RESEARCH PAPER

Differences in Growth Performance, Meat Quality, Muscle Protein and Gut Microbiota of Linwu Ducks under Different Farming Systems Based on Multi-Omics Technology

  • LIU Yang , 1 ,
  • LI Chuang 1 ,
  • HUANG Xuan 1 ,
  • DENG Ping 1 ,
  • ZHANG Xu 1 ,
  • JIANG Guitao 1 ,
  • WAN Weican 1 ,
  • HU Yan 1 ,
  • KUANG Wentao 2 ,
  • DAI Qiuzhong , 1, *
Expand
  • 1 Hunan Institute of Animal Husbandry and Veterinary Medicine, Hunan Academy of Agricultural Sciences, Changsha 410131, China
  • 2 Hunan Linwu Shunhua Duck Industry Development Co., Ltd., Linwu 424300, China
*professor, E-mail:

Received date: 2025-02-27

  Online published: 2025-11-14

Abstract

This study aimed to explore the differences in growth performance, meat quality, muscle protein and gut microbiota of Linwu ducks reared in free-range farming system (FRS) and cage farming system (CFS) using proteomics and microbial genomics. Three thousand and one hundred 28-day-old female Linwu ducks were selected for the experiment, in which 3 000 were farmed in FRS with 10 replicates of each with 300 ducks and 100 were farmed in CFS with 10 replicates of each with 10 ducks. The farming density was 4 ducks/m2 for both farming systems. The farming period was 42 d. The results showed as follows: 1) comparing to FRS, CFS ducks had significantly higher final body weight (P=0.014), average daily weight gain (P=0.016), breast muscle rate (P=0.012) and abdominal fat rate (P<0.001), but had significantly lower carcass rate (P=0.011) and thigh muscle rate (P<0.001). 2) Comparing to FRS, CFS ducks had significantly higher brightness value (P<0.001), yellowness value (P<0.001) and drip loss (P=0.021), but had significantly lower redness value (P=0.034) and shear force (P<0.001) in breast muscle. 3) Comparing to FRS, CFS ducks had significantly lower activities of superoxide dismutase (P=0.002), catalase (P<0.001) and glutathione peroxidase (P<0.001), as well as total antioxidant capacity (P=0.001) in breast muscle. 4) The proteomic analysis revealed 646 differentially accumulated proteins (DAPs) in breast muscle samples between two farming systems, which were involved in metabolic pathways of glycine, serine and threonine metabolism, as well as cysteine and methionine metabolism and so on. 5) The microbial genomic analysis identified 46 differential microbial genera in cecal chyme samples between two farming systems. 6) The correlation analysis showed that bisphosphoglycerate mutase (BPGM), phosphoglycerate dehydrogenase (PHGDH), phosphoserine phosphatase (PSPH), lactate dehydrogenase A (LDHA), enolase phosphatase 1 (ENOPH1) and branched-chain amino acid transaminase 1 (BCAT1) were significantly correlated with the meat color and antioxidant enzyme activities in breast muscle of Linwu ducks (P<0.05); and 40 differential microbial genera were significantly correlated to the meat color, shear force, drip loss, or antioxidant enzymes activities in breast muscle (P<0.05). In conclusion, comparing to CFS, FRS can decrease the growth performance and breast muscle yield of Linwu ducks, but improve the meat quality of breast muscle; the farming system alters the breast muscle protein and gut microbiota profile of Linwu ducks, which could be key factors to the meat quality changes.

Cite this article

LIU Yang , LI Chuang , HUANG Xuan , DENG Ping , ZHANG Xu , JIANG Guitao , WAN Weican , HU Yan , KUANG Wentao , DAI Qiuzhong . Differences in Growth Performance, Meat Quality, Muscle Protein and Gut Microbiota of Linwu Ducks under Different Farming Systems Based on Multi-Omics Technology[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7577 -7592 . DOI: 10.12418/CJAN2025.616

肉鸭在我国具有重要的商业价值,年出栏量超过45亿只,占全球肉鸭出栏量的2/3[1]。临武鸭是湖南省著名的地方鸭品种。临武鸭与北京鸭相比生长周期更长,且肉中的代谢物结构与北京鸭有明显差异,因此临武鸭肉具有其独特品质。临武鸭的养殖历史可以追溯到中国明代,主要的养殖模式是传统水田或稻田放养模式(free-range farming system,FRS)。随着市场对鸭肉需求的增加,肉鸭养殖逐渐向效率更高的离水集约化笼养模式(cage farming system,CFS)转型。相比依赖水域的FRS,离水集约化CFS不但养殖效率更高,还可减少鸭肠道疾病,缓解水污染。但生长环境的改变也对鸭的生理习性和动物福利造成影响,如无法游泳和梳理羽毛等[2]
肉品质是消费者购买肉类产品最关心的指标,可分为外观品质(如肉色、纹理、pH等)、食用品质(如嫩度、风味等)和信用品质(如新鲜度、动物福利等)[3]。鸭肉品质受到多种因素的影响,如品种、年龄、性别及环境等[4-6]。已有研究表明,养殖模式会影响鸭的动物福利、抗逆性、肠道微生物结构以及生产性能[7-8],但其对鸭肉品质的影响尚不确定。因此,本研究拟采用串联质量标签(tandem mass tag,TMT)定量蛋白质组学和16S rDNA测序技术考察养殖模式对临武鸭生长性能、肉品质、肌肉蛋白质和肠道菌群的影响,以期为临武鸭养殖模式的转型升级提供参考。

1 材料与方法

1.1 试验设计和饲粮

本试验经湖南省畜牧兽医研究所伦理委员会批准,批准编号为HNXMSY20230601。试验选取同一批次3 100羽体重相近的28日龄健康雌性临武鸭,其中3 000羽为放养组(FRS组),100羽为笼养组(CFS组)。FRS组试验鸭饲养于单元格组成的半开放式鸭舍,以单元格为重复共10个重复,每个重复饲养300羽;每个单元格有75 m2的休息室供鸭子夜间休息(密度为4羽/m2),还有室外活动场(120 m2)和室外水池(30 m2)供鸭子白天活动,每个活动场配有10个喂食器。CFS组试验鸭饲养于室内双层养殖笼(长、宽、高分别为80、63、38 cm)中,每笼饲养2羽(密度为4羽/m2);笼一侧装有料槽,顶部装有自动水线和乳头饮水器。CFS组试验鸭共10个重复,每个重复10羽。
试验于7月开始,共持续42 d。试验期每天投料2次(07:00和16:00各1次),投料量根据前期试验结果[9]设定为15 g/羽。试验鸭饲喂相同的饲粮,饲粮参考《临武鸭营养需要》(DB43/T 898—2014)[10]配制,其组成及营养水平见表1。饲粮代谢能以及有效磷和氨基酸含量参照《中国饲料成分及营养价值表(2024年第35版)》[11]进行计算;饲粮粗蛋白质、钙、总磷、粗纤维、粗脂肪和水分含量分别参考《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)[12]、《饲料中钙的测定》(GB/T 6436—2018)[13]、《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)[14]、《饲料中粗纤维的含量测定》(GB/T 6434—2022)[15]、《饲料中粗脂肪的测定》(GB/T 6433—2006)[16]和《饲料中水分的测定》(GB/T 6435—2014)[17]进行测定,干物质含量(%)=100-水分含量(%)。试验期试验鸭自由饮水,并按正常免疫程序进行免疫接种。
表1 饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the diet (DM basis)%

项目Items 含量Content
原料Ingredients
玉米Corn 50.68
豆粕Soybean meal 24.50
面粉Flour 10.00
次粉Wheat middling 7.00
磷酸氢钙CaHPO4 1.30
食盐NaCl 0.30
L-赖氨酸硫酸盐L-lysine·H2SO4 0.27
DL-蛋氨酸DL-methionine 0.12
石粉Limestone 1.20
膨润土Bentonite 3.63
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
代谢能Metabolic energy/(MJ/kg) 11.30
干物质(风干基础)
Dry matter (air-dry basis)
87.30
粗蛋白质Crude protein 17.00
粗纤维Crude fiber 3.53
粗脂肪Ether extract 2.40
钙Calcium 0.90
总磷Total phosphorus 0.56
有效磷Available phosphorus 0.35
赖氨酸Lysine 0.90
蛋氨酸Methionine 0.40
蛋氨酸+胱氨酸Methionine+cystine 0.79
异亮氨酸Isoleucine 0.73
苏氨酸Threonine 0.60
色氨酸Tryptophane 0.26

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 12 000 IU,VD3 2 500 IU,VE 20 mg,VK3 3 mg,VB1 3 mg,VB2 8 mg,VB6 7 mg,VB12 0.03 mg,生物素 biotin 0.1 mg,泛酸 pantothenic acid 20 mg,烟酸 nicotinic acid 50 mg,叶酸 folic acid 1.5 mg,Cu (as copper sulfate) 9 mg,Zn (as zinc sulfate) 110 mg,Fe (as ferrous sulfate) 100 mg,Mn (as manganese sulfate) 100 mg,Se (as sodium selenite) 0.16 mg,I (as potassium iodide) 0.6 mg。

2)代谢能、有效磷和氨基酸为计算值,其余营养水平为实测值。Metabolic energy, available phosphorus and amino acids were calculated values, while the other nutrient levels were measured values.

1.2 测定指标及方法

1.2.1 生长性能

试验开始和结束时,所有试验鸭禁食24 h后,FRS组每重复随机挑选30羽试验鸭进行称重;CFS组以重复为单位称量所有试验鸭体重。试验期间记录每次加料重量,计算试验全程试验鸭平均日增重、平均日采食量和料重比。

1.2.2 屠宰性能

试验结束时,每重复随机选取1羽试验鸭(n=10)测定屠宰性能。试验鸭禁食12 h后称量活体重,颈动脉放血致死后手工拔毛称取胴体重量,计算屠宰率;解剖胴体并去除食道、气管、脾脏、胰腺、性腺、胆囊、嗦囊、胃肠道和肌胃内容物,称量半净膛重量,计算半净膛率;再移除心脏、肝脏、肌胃、腺胃、肺脏和腹脂,称量全净膛及上述器官重量,计算全净膛率、腹脂率和器官指数(器官指数=器官重量/活体重);剥下胸肌和腿肌并称重,计算胸肌率和腿肌率。

1.2.3 肌肉和盲肠食糜样品采集

屠宰性能测定完后,收集试验鸭0.5 g左侧胸肌,于-80 ℃保存用于蛋白质组学测定;另收集小块胸肌(1 cm3),匀浆后于-20 ℃保存用于抗氧化指标测定;其余新鲜肉样用于肉品质测定。收集试验鸭盲肠食糜于2 mL EP管中,于-80 ℃保存用于微生物16S rDNA提取和测序。

1.2.4 胸肌抗氧化指标

于-20 ℃取出试验鸭胸肌匀浆,室温下融化后采用试剂盒(南京建成生物工程研究所)测定过氧化氢酶(catalase,CAT)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)、超氧化物歧化酶(superoxide dismutase,SOD)活性以及总抗氧化能力(total antioxidant capacity,T-AOC)和丙二醛(malondialdehyde,MDA)含量,测定过程遵照试剂盒说明书操作,借助全波长酶标仪(Multiskan Go,Thermo Fisher Scientific,美国)测定吸光度。

1.2.5 肉品质

试验鸭处死后45 min,采用色度计(Konica Minolta,日本)测定3次胸肌亮度(L*)值、红度(a*)值和黄度(b*)值,取平均值作为最终结果。剪切力测定方法参考《肉嫩度的测定 剪切力测定法》(NY/T 1180—2006)[18],取新鲜肉样(长×宽×高为6 cm×3 cm×3 cm)在80 ℃水浴中加热约10 min至中心温度达到70 ℃,取出冷却后以肌纤维垂直于切割方向放入嫩度仪(北京布拉德科技发展有限公司)测定剪切力。滴水损失测定方法参考宋佳雪等[19]的方法,取约10 g新鲜肉样(长×宽×高为4 cm×2 cm×2 cm),准确称重后悬挂于4 ℃保存24 h,干燥肉样并再次称重,滴水损失计算公式如下:
滴水损失(%)=100×(处理前肉样重量-处理后肉样重量)/处理前肉样重量。

1.2.6 肌肉蛋白质组学分析

1.2.6.1 蛋白质提取和TMT标记

于-80 ℃取出试验鸭肉样融化后置于2 mL缓冲液[4%十二烷基硫酸钠+100 mmol/L二硫苏糖醇+150 mmol/L三羟甲基氨基甲烷盐酸盐(Tris-HCl)]裂解,匀浆并煮沸5 min后超声破碎;未溶解样品在4 ℃条件下1 000×g再次离心15 min。采用试剂盒(Bio-Rad,美国)评估上清液中蛋白质浓度:使用5 mmol/L二硫索糖醇在56 ℃条件下还原1 mg总蛋白30 min,然后用11 mmol/L碘乙酰胺在黑暗条件烷基化20 min;于4 ℃条件反复离心后,将蛋白质悬浊液移至新管,并在37 ℃条件下加入25 mmol/L三乙胺硼烷(triethylamine borane,TEAB)和胰蛋白酶(蛋白质与胰蛋白酶的比例为50∶1)混合液进行酶切反应16 h。采用分光光度计(Thermo Fisher Scientific,美国)在280 nm光密度下测定所得肽密度。将每种TMT试剂溶于41 μL无水腈中,离心后与溶于TEAB的蛋白质消化液40 μL混合,室温静置60 min后加入8 μL 5%羟胺,孵育15 min。最后收集标记肽样品进行冻干。

1.2.6.2 高效液相色谱(high performance liquid chromatograph,HPLC)分馏和液相色谱-串联质谱(liquid chromatography-tandem mass,LC-MS/MS)分析

TMT标记多肽混合物的HPLC分馏采用UPLC 3000系统(Thermo Fisher Scientific,美国)和XBridge BEH 300 C18色谱柱(Waters,美国),采用的缓冲液为0.1%甲酸水溶液(A液)和0.1%甲酸甲醇溶液(B液),pH调至10进行梯度洗脱,流速为0.8 mL/min,B液梯度变化如下:0~2 min,2%~5%;2~42 min,5%~20%;42~50 min,20%~35%;50~52 min,35%~90%;52~60 min,90%。总共分离30个组分,随后肽段合并为15个组分。最后用0.1%甲酸重悬样品,继续使用EASY-nLC 1000和QE质谱仪(Thermo Fisher Scientific,美国)进行分析。质谱扫描范围参数设置为300~1 800 m/z,扫描分辨率参数设置为70 000,离子源电压参数设置为2.2 kV,串联质谱扫描动态排除时间设置为30 s。一级质谱参数设置如下:自动增益控制(automatic gain control,AGC)为1E6,最大注入时间为50 ms。二级质谱参数设置如下:AGC为1E5,最大注入时间为100 ms。
LC-MS/MS原始数据的解释和鉴定基于Proteome Discoverer 2.4软件UniProt-Anatidae数据库,参数设置如下:酶切方式为胰蛋白酶,漏切位点数为2,肽段最小长度为6个氨基酸残基,肽段离子质量误差容忍度为20×10-6,固定修饰为半胱氨酸烷基化(C),可变修饰为乙酰基化(N-term)、氧化(M)和脱酰氨基化(NQ),定量方法为TMT-16plex,蛋白质鉴定的假阳性率(false discovery rate,FDR)为1%。
差异积累蛋白(differentially accumulated proteins,DAPs)的筛选基于Student's t检验P<0.05,且差异倍数(fold change,FC)>1.20或<0.83。DAPs的基因本体论(gene ontology,GO)功能注释采用Blast2GO软件,通路富集分析基于京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)通路数据库,且P<0.05被认为有统计学意义。

1.2.6.3 平行反应监测(parallel reaction monitoring,PRM)验证DAPs

为验证DAPs在不同组试验鸭肌肉中的含量,随机选择若干DAPs进行PRM定量分析,操作流程如下:首先将肌肉样品按照TMT分析流程进行蛋白质提取和消化,加入标准肽作为内参,然后使用EASY-nLC TM1200和QE质谱仪(Thermo Fisher Scientific,美国)进行PRM分析。质谱扫描分辨率设置为70 000,质谱扫描范围设置为200 m/z,AGC设置为3E6,最大离子注入时间为200 ms。原始数据分析采用Skyline软件,通过肽序列信号强度确定待测肽数量。

1.2.7 肠道菌群分析

1.2.7.1 微生物16S rDNA测序

于-80 ℃取出试验鸭盲肠食糜样品,采用试剂盒(上海拜力生物科技有限公司)抽提微生物总DNA,然后采用341F(5'-CCTACGGGNBGCASCAG-3')和805R(5'-GACTACNVGGGTATCTAATCC-3')对16S rRNA基因V3~V4区进行PCR扩增,采用HiSeq 2500平台(Illumina,美国)对扩增子进行测序,原始数据已存入NCBI数据库,登记号为PRJNA1105399。采用Fastp软件对原始测序序列进行质控,采用Usearch软件根据97%相似度对序列进行操作分类单元(operational taxonomic unit,OTU)聚类并剔除嵌合体。最后基于SILVA数据库,采用RDP分类器对OTU代表序列分类注释,对比阈值为70%。

1.2.7.2 微生物数据分析

对盲肠菌群进行α多样性分析,包括分析Ace、Chao、Coverage、Shannon、Simpson和Sobs指数等,用以反映微生物群落的多样性和丰富度。盲肠菌群进行β多样性分析采用主坐标分析(principal coordinate analysis,PCoA),用以评估组间微生物群落在组成上的相似性和差异性,距离指数采用OTU水平的Bray-Curtis距离。采用线性判别分析(linear discriminant analysis,LDA)效应大小(LEfSe)分析筛选组间差异显著微生物,判断依据为LDA评分>3且P<0.05。

1.3 数据统计分析

临武鸭生长性能、屠宰性能和肉品质数据分析采用SPSS 19.0软件的Student's t检验,结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著。

2 结果与分析

2.1 养殖模式对临武鸭生长性能和屠宰性能的影响

表2可知,2组间试验鸭初体重(P=0.595)和平均日采食量(P=0.882)无显著差异。与FRS组相比,CFS组试验鸭末体重(P=0.014)和平均日增重(P=0.016)显著提高,料重比显著降低(P=0.002)。2组试验鸭屠宰率、半净膛率和全净膛率分别为>84%、>77%和>70%,均已达到肉鸭屠宰性能正常水平[1]。但与FRS相比,CFS组试验鸭屠宰率(P=0.011)、腿肌率(P<0.001)、心脏指数(P=0.024)和肝脏指数(P<0.001)显著降低,胸肌率(P=0.012)和腹脂率(P<0.001)显著提高。
表2 养殖模式对临武鸭生长性能和屠宰性能的影响

Table 2 Effects of farming system on growth performance and slaughter performance of Linwu ducks

项目
Items
组别Groups 均值标准误
SEM
P
P-value
FRS CFS
初体重Initial body weight/g 667.18 661.00 5.367 0.595
末体重Final body weight/g 1 485.00 1 744.12 58.146 0.014
平均日增重Average daily gain/g 19.47 25.79 1.437 0.016
平均日采食量Average daily feed intake/g 268.34 268.72 0.018 0.882
料重比Feed to gain ratio 13.79 10.63 0.621 0.002
屠宰率Carcass rate/% 86.03 84.61 0.292 0.011
半净膛率Semi-eviscerated rate/% 78.57 77.79 0.237 0.100
全净膛率Eviscerated rate/% 70.63 70.47 0.246 0.758
胸肌率Breast muscle rate/% 12.12 13.39 0.264 0.012
腿肌率Thigh muscle rate/% 14.50 11.02 0.441 <0.001
腹脂率Abdominal fat rate/% 0.87 1.68 0.121 <0.001
心脏指数Heart index/(mg/g) 7.74 6.88 0.197 0.024
肝脏指数Liver index/(mg/g) 20.87 16.33 0.661 <0.001
肌胃指数Gizzard index/(mg/g) 28.81 25.49 0.887 0.059
腺胃指数Proventriculus index/(mg/g) 3.72 3.09 0.165 0.054
脾脏指数Spleen index/(mg/g) 0.82 0.69 0.069 0.366

2.2 养殖模式对临武鸭胸肌抗氧化指标的影响

表3可知,与FRS组相比,CFS组试验鸭胸肌SOD(P=0.002)、CAT(P<0.001)、GSH-Px(P<0.001)活性以及T-AOC(P=0.001)显著降低,说明CFS组试验鸭抗氧化能力低于FRS组试验鸭;2组间胸肌MDA含量无显著差异(P=0.159),说明2组试验鸭氧化应激程度相近。
表3 养殖模式对临武鸭胸肌抗氧化指标的影响

Table 3 Effects of farming system on antioxidant indices in breast muscle of Linwu ducks

项目
Items
组别Groups 均值标准误
SEM
P
P-value
FRS CFS
超氧化物歧化酶SOD/(ng/g) 8.68 7.00 0.295 0.002
过氧化氢酶CAT/(pg/g) 527.40 404.00 19.298 <0.001
谷胱甘肽过氧化物酶GSH-Px/(ng/g) 13.41 9.10 0.621 <0.001
总抗氧化能力T-AOC/(mmol/g) 0.37 0.31 0.010 0.001
丙二醛MDA/(nmol/g) 7.20 7.99 0.280 0.159

2.3 养殖模式对临武鸭肉品质的影响

表4可知,与FRS组相比,CFS组试验鸭胸肌L*值(P<0.001)和b*值(P<0.001)显著提高,胸肌a*值显著降低(P=0.034);此外,CFS组胸肌剪切力显著降低(P<0.001),胸肌滴水损失显著提高(P=0.021)。
表4 养殖模式对临武鸭肉品质的影响

Table 4 Effects of farming system on meat quality of Linwu ducks

项目
Items
组别Groups 均值标准误
SEM
P
P-value
FRS CFS


肉色Meat color
亮度L* 40.26 53.14 1.842 <0.001
红度a* 9.41 7.59 0.441 0.034
黄度b* 2.99 5.72 0.421 <0.001
剪切力Shear force/N 49.87 22.65 3.557 <0.001
滴水损失Drip loss/% 3.38 5.65 0.507 0.021

2.4 不同养殖模式下临武鸭肌肉蛋白质组学分析

2.4.1 胸肌DAPs及GO功能注释
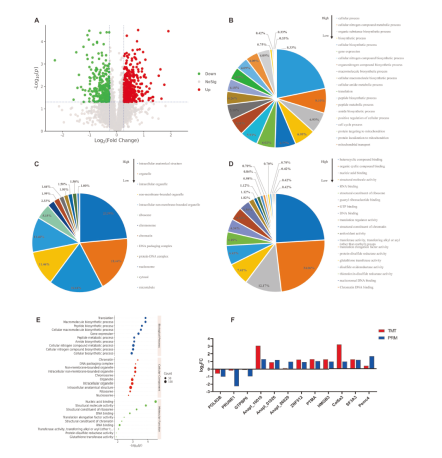
本研究采用TMT定量蛋白质组学技术测定2种养殖模式下临武鸭胸肌DAPs。如图1-A所示,2组胸肌样品中共鉴定出646种DAPs(P<0.05),其中374种在FRS组胸肌中显著上调(FC>1.20),272种在CFS组胸肌中显著上调(FC<0.83)。上述DAPs的GO功能注释分为3类:生物过程(biological process,BP)、细胞组分(cellular component,CC)和分子功能(molecular function,MF),其中DAPs在BP中主要富集的术语包括细胞过程、细胞氮化合物代谢过程和有机物生物合成过程等(图1-B),在CC中主要富集的术语包括细胞内解剖结构、细胞器和细胞内细胞器等(图1-C),在MF中主要富集的术语包括杂环化合物结合、有机环化合物结合和核酸结合等(图1-D)。图1-E展示了GO功能注释分类中富集程度最高的前10项术语。
图1 临武鸭胸肌蛋白质组学分析

A:差异积累蛋白;B:DAPs在GO功能注释生物过程中的比例;C:DAPs在GO功能注释细胞组分中的比例;D:DAPs在GO功能注释分子功能中的比例;E:3种GO功能注释下排名前10的术语;F:PRM分析和TMT定量蛋白质组学分析结果比较。A: DAPs;B: proportion of DAPs in biological process of GO functional annotation; C: proportion of DAPs in cell component of GO functional annotation; D: proportion of DAPs in molecular function of GO functional annotation; E: top 10 terms in 3 kinds of GO functional annotation; F: comparison of PRM analysis and TMT quantitative proteomics analysis results.

-Log10(p):-log10(P值) -log10(P-value);Log2(Fold Change):log2(差异倍数);Down:下调 down-regulated;NoSig:不显著 non-significant;Up:上调 up-regulated;High:高;Low:低;cellular process:细胞过程;cellular nitrogen compound metabolic process:细胞氮化合物代谢过程;organic substance biosynthetic process:有机物生物合成过程;biosynthetic process:生物合成过程;cellular biosynthetic process:细胞生物合成过程;gene expression:基因表达;cellular nitrogen compound biosynthetic process:细胞氮化合物生物合成过程;organonitrogen compound biosynthetic process:有机氮化合物生物合成过程;macromolecule biosynthetic process:大分子生物合成过程;cellular macromolecule biosynthetic process:细胞大分子生物合成过程;cellular amide metabolic process:细胞酰胺代谢过程;translation:翻译;peptide biosynthetic process:肽生物合成过程;peptide metabolic process:肽代谢过程;amide biosynthetic process:酰胺生物合成过程;positive regulation of cellular process:细胞过程的正调节;cell cycle process:细胞周期过程;protein targeting to mitochondrion:靶向线粒体的蛋白质;protein localization to mitochondrion:定位线粒体的蛋白质;mitochondrial transport:线粒体转运;intracellular anatomical structure:细胞内解剖结构;organelle:细胞器;intracellular organelle:细胞内细胞器;non-membrane-bounded organelle:无膜结合细胞器;intracellular non-membrane-bounded organelle:细胞内无膜结合细胞器;ribosome:核糖体;chromosome:染色体;chromatin:染色质;DNA packaging complex:DNA包装复合物;protein-DNA complex:蛋白质-DNA复合物;nucleosome:核小体;cytosol:胞质溶胶;microtubule:微管;heterocyclic compound binding:杂环化合物结合;organic cyclic compound binding:有机环化合物结合;nucleic acid binding:核酸结合;structural molecule activity:结构分子活性;RNA binding:RNA结合;structural constituent of ribosome:核糖体结构成分;guanyl ribonucleotide binding:脒基核糖核苷酸结合;GTP binding:GTP结合;DNA binding:DNA结合;translation regulator activity:翻译调节活性;structural constituent of chromatin:染色质结构成分;antioxidant activity:抗氧化活性;transferase activity, transferring alkyl or aryl (other than methyl) groups:转移酶活性,转移烷基或芳香基(甲基除外)基团;translation elongation factor activity:翻译延长因子活性;protein-disulfide reductase activity:蛋白质-二硫化物还原酶活性;glutathione transferase activity:谷胱甘肽转移酶活性;disulfide oxidoreductase activity:二硫化物氧化还原酶活性;thioredoxin-disulfide reductase activity:硫氧还蛋白-二硫化物还原酶活性;nucleosomal DNA binding:核小体DNA结合;chromatin DNA binding:染色质DNA结合;Biological Process:生物过程;Cellular Component;细胞组分;Molecular Function:分子功能;POLR2B:RNA聚合酶Ⅱ亚基B RNA polymerase Ⅱ subunit B;PRUNE1:修剪外聚磷酸酶1 prune exopolyphosphatase 1;GTPBP6:GTP结合蛋白6 GTP binding protein 6;ZNF512:锌指蛋白512 zinc finger protein 512;PTMA:前胸腺素α prothymosin α;HMGB3:高迁移率族蛋白B3 high mobility group box 3;Col6a3:Ⅵ型胶原蛋白α3链 collagen type Ⅵ α3 chain;SF3A3:剪接因子3a亚基3 splicing factor 3a subunit 3;Psmc4:蛋白酶体26S亚基ATP酶4 proteasome 26S subunit ATPase 4;Count:计数;log2FC:log2(差异倍数) log2(fold change);TMT:串联质量标签 tandem mass tag;PRM:平行反应监测 parallel reaction monitoring。

Fig.1 Proteomic analysis of breast muscle of Linwu ducks

为了验证TMT定量蛋白质组学的分析结果,本研究采用PRM分析对12个随机选择的DAPs进行检验,结果如图1-F所示,其中RNA聚合酶Ⅱ亚基B(POLR2B)、修剪外聚磷酸酶1(PRUNE1)和GTP结合蛋白6(GTPBP6)的丰度在CFS组胸肌中上调(log2FC>0),Anapl_10010、Anapl_01026、Anapl_06820、锌指蛋白512(ZNF512)、前胸腺素α(PTMA)、高迁移率族蛋白B3(HMGB3)、Ⅵ型胶原蛋白α3链(Col6a3)、剪接因子3a亚基3(SF3A3)和蛋白酶体26S亚基ATP酶4(Psmc4)的丰度在FRS组胸肌中上调(log2FC<0)。该结果与TMT定量蛋白质组学分析结果一致,证明了数据的可靠性。

2.4.2 DAPs蛋白质互作(protein-protein interaction,PPI)网络及其对肉品质的影响
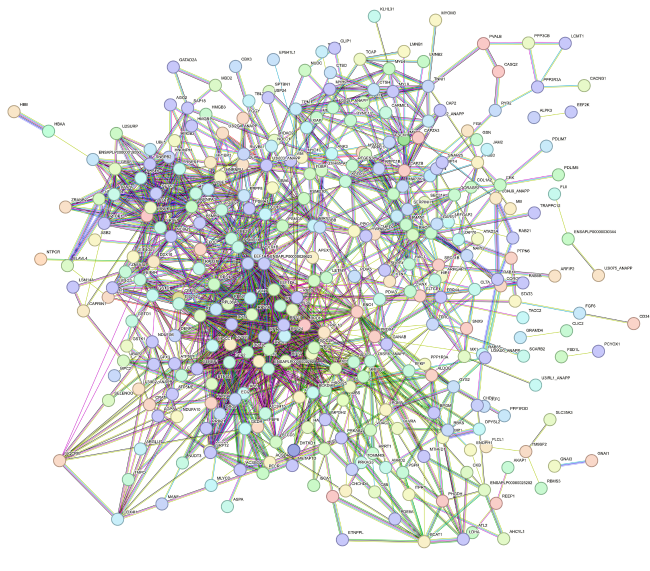
本研究利用STRING软件绘制了DAPs的PPI网络,如图2所示,网络由398个蛋白质和1 404个互作关系对组成。KEGG通路分析显示共有6条显著富集通路,其中与代谢相关的通路包括甘氨酸、丝氨酸和苏氨酸代谢(FDR=0.019)以及半胱氨酸和蛋氨酸代谢(FDR=0.010),提示FRS组和CFS组临武鸭胸肌DAPs通过调控上述代谢通路影响肉品质。
图2 DAPs蛋白质互作网络

限于篇幅,仅注释主要蛋白质名称。Due to space limitations, only names of main proteins were annotated.

BPGM:二磷酸甘油酸变位酶 bisphosphoglycerate mutase;PHGDH:磷酸甘油酸脱氢酶 phosphoglycerate dehydrogenase;PSPH:磷酸丝氨酸磷酸酶 phosphoserine phosphatase;LDHA:乳酸脱氢酶A lactate dehydrogenase A;ENOPH1:烯醇酶磷酸酶1 enolase phosphatase 1;BCAT1:支链氨基酸转氨酶1 branched-chain amino acid transaminase 1。图3同 The same as Fig.3

Fig.2 Protein-protein interaction network of DAPs

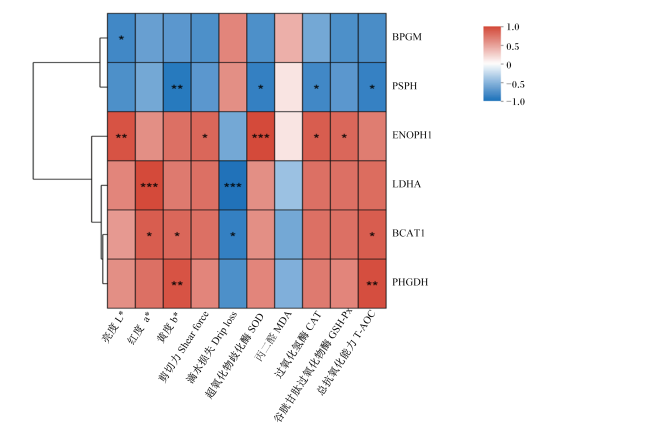
本研究中甘氨酸、丝氨酸和苏氨酸代谢通路中共发现3个DAPs互作关系显著(P<0.05),分别是二磷酸甘油酸变位酶(bisphosphoglycerate mutase,BPGM)、磷酸甘油酸脱氢酶(phosphoglycerate dehydrogenase,PHGDH)和磷酸丝氨酸磷酸酶(phosphoserine phosphatase,PSPH);半胱氨酸和蛋氨酸代谢通路中共发现4个DAPs互作关系显著(P<0.05),分别是乳酸脱氢酶A(lactate dehydrogenase A,LDHA)、烯醇酶磷酸酶1(enolase phosphatase 1,ENOPH1)、支链氨基酸转氨酶1(branched-chain amino acid transaminase 1,BCAT1)和PHGDH。上述DAPs与肉品质相关指标的Spearman相关性分析显示(图3),BPGM与胸肌肉色L*值呈显著负相关(P<0.05);PSPH与胸肌肉色b*值、SOD和CAT活性以及T-AOC呈显著负相关(P<0.05);ENOPH1与胸肌肉色L*值、剪切力以及SOD、CAT和GSH-Px活性呈显著正相关(P<0.05);LDHA与胸肌肉色a*值呈显著正相关(P<0.05),与胸肌滴水损失呈显著负相关(P<0.05);BCAT1与胸肌肉色a*值和b*值以及T-AOC呈显著正相关(P<0.05),与胸肌滴水损失呈显著负相关(P<0.05);PHGDH与胸肌b*值和T-AOC呈显著正相关(P<0.05)。
图3 代谢相关DAPs与胸肌肉品质相关指标相关性热图

*表示显著相关(P<0.05),**(P<0.01)和***(P<0.001)表示极显著相关。图5同。

Fig.3 Heat map of correlation between metabolism related DAPs and breast muscle quality related indices

* indicated significant correlation (P<0.05), and ** (P<0.01) and *** (P<0.001) indicated extremely significant correlation. The same as Fig.5.

2.5 不同养殖模式下临武鸭肠道菌群分析

2.5.1 肠道菌群结构分析

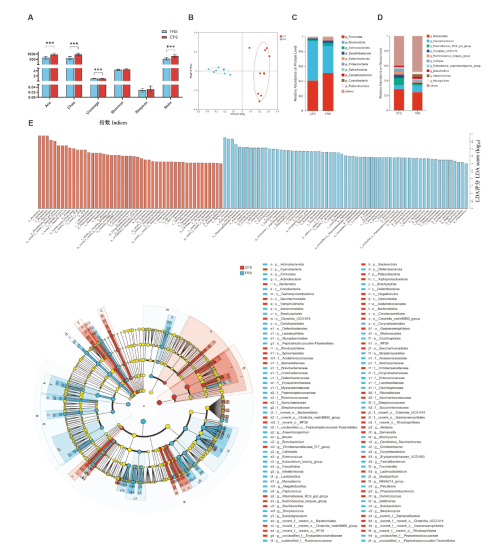
菌群α多样性分析结果如图4-A所示,CFS组试验鸭盲肠菌群Ace、Chao、Coverage和Sobs指数均显著高于FRS组(P<0.05),提示在本试验条件下CFS组试验鸭肠道菌群丰富度高于FRS组;2组间盲肠菌群Shannon和Simpson指数无显著差异(P>0.05),提示2组试验鸭肠道菌群均匀度相似。
图4 临武鸭肠道菌群结构分析

A:α多样性分析,***表示P<0.001;B:β多样性分析;C:在门水平上的组成;D:在属水平上的组成;E:LEfSe分析。A: α diversity analysis, *** indicated P<0.001; B: β diversity analysis; C: composition at phylum level; D: composition at genus level; E: LEfSe analysis.

FRS:FRS组 FRS group;CFS:CFS组 CFS group;PC1:主成分1 principal component 1;PC2:主成分2 principal component 2;Relative Abundance on Phylum Level:门水平相对丰度;Relative Abundance on Genus Level:属水平相对丰度。

仅注释主要菌群的名称 Only names of main microbiota were annotated。Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Actinobacteriota:放线菌门;Desulfobacterota:脱硫杆菌门;Deferribacterota:脱铁杆菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Campilobacterota:弯曲杆菌门;Cyanobacteria:蓝细菌门;Patescibacteria:髌骨菌门;other:其他;Bacteroides:拟杆菌属;Faecalibacterium:粪杆菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Clostridia_UCG-014:梭菌纲UCG-014;Ruminococcus_torques_group:瘤胃球菌属扭链群;Alistipes:另枝菌属;Eubacterium_coprostanoligenes_group:产粪甾醇真细菌群;Desulfovibrio:脱硫弧菌属;Intestinimonas:肠单胞菌属;Mucispirillum:穆齐螺菌属;Phascolarctobacterium:考拉杆菌属。

Fig.4 Analysis of gut microbiota structure of Linwu ducks

菌群β多样性分析结果如图4-B所示,2组试验鸭盲肠菌群集落区域明显分离,表明2组试验鸭肠道菌群组成存在差异。如图4-C所示,在门水平上,厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、放线菌门(Actinobacteriota)、脱硫杆菌门(Desulfobacterota)和脱铁杆菌门(Deferribacterota)是试验鸭盲肠菌群的优势菌门;如图4-D所示,在属水平上,拟杆菌属(Bacteroides)、粪杆菌属(Faecalibacterium)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、梭菌纲UCG-014(Clostridia_UCG-014)和瘤胃球菌属扭链群(Ruminococcus_torques_group)是试验鸭盲肠菌群的优势菌属。LEfSe分析结果显示(图4-E),65种差异菌在FRS组试验鸭盲肠食糜中显著富集(P<0.05),49种差异菌在CFS组试验鸭盲肠食糜中显著富集(P<0.05)。其中,在门水平,放线菌门(LDA评分=4.12,P=0.009)和厚壁菌门(LDA评分=4.67,P=0.022)相对丰度在FRS组中显著提高,而拟杆菌门(LDA评分=4.89,P=0.011)相对丰度在CFS组显著提高;在属水平,FRS组发现27种细菌相对丰度显著提高(P<0.05),包括粪杆菌属、肠单胞菌属(Intestinimonas)和穆齐螺菌属(Mucispirillum)等;CFS组发现19种细菌相对丰度显著提高(P<0.05),包括理研菌科RC9肠道群、另枝菌属(Alistipes)和考拉杆菌属(Phascolarctobacterium)等。

2.5.2 关键肠道菌群对肉品质的影响

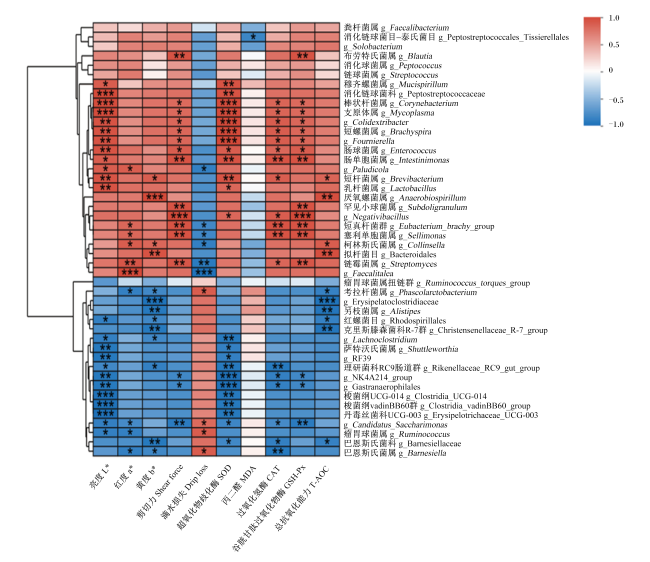
临武鸭盲肠菌群在属水平上差异菌相对丰度与肉品质相关指标的Spearman相关性分析结果如图5所示,胸肌肉色与Paludicola、短杆菌属(Brevibacterium)等19种菌属相对丰度呈显著正相关(P<0.05),与考拉杆菌属、红螺菌目(Rhodospirillales)等18种菌属相对丰度呈显著负相关(P<0.05);胸肌剪切力与布劳特氏菌属(Blautia)、棒状杆菌属(Corynebacterium)等13种菌属相对丰度呈显著正相关(P<0.05),与Gastranaerophilales、NK4A214_group和Candidatus_Saccharimonas相对丰度呈显著负相关(P<0.05);胸肌滴水损失与考拉杆菌属、Candidatus_Saccharimonas等4种菌属相对丰度呈显著正相关(P<0.05),与Paludicola、塞利单胞菌属(Sellimonas)等6种菌属相对丰度呈显著负相关(P<0.05);胸肌抗氧化性能与棒状杆菌属、支原体属(Mycoplasma)等17种菌属相对丰度呈显著正相关,与NK4A214_group、Gastranaerophilales等11种菌属相对丰度呈显著负相关(P<0.05)。
图5 关键肠道菌群与胸肌肉品质相关指标相关性热图

Fig.5 Heat map of correlation between key gut microbiota and breast muscle quality related indices

3 讨论

3.1 养殖模式对临武鸭生长性能和屠宰性能的影响

生长性能和屠宰性能是肉鸭经济效益的重要指标。本试验结果显示,与FRS组相比,CFS组临武鸭生长性能、胸肌率和腹脂率显著提高,但屠宰率、腿肌率以及心脏和肝脏指数显著降低。FRS组试验鸭可进行散步、游泳和梳毛等活动,而CFS组试验鸭只能站立或趴卧,因此与FRS组相比,CFS组试验鸭活动空间受限,活动量较小,生长性能较好。但CFS组动物福利较差,可能是其屠宰率降低的原因之一[8]。器官指数反映了动物生长和健康状况。FRS组试验鸭各器官指数均高于CFS组,说明FRS组试验鸭健康状况较好。另外,FRS组试验鸭可进行大量活动,既刺激了腿肌生长,又减少了腹部脂肪沉积;而CFS组试验鸭活动空间小,且长时间趴卧,造成胸肌生长和脂肪积累,最终导致2种模式下临武鸭肌肉和脂肪产量的差异。前人在金定鸭和小体型肉鸭的研究中也发现了相同的结果,相比开放式稻鸭养殖模式,网上笼养金定鸭屠宰率和腿肌率较低[8];笼养小体型肉鸭腹脂率高于陆地平养肉鸭[1]

3.2 养殖模式对临武鸭胸肌抗氧化指标的影响

近年来,氧化应激成为影响畜禽生产性能的重要因素。大量研究表明,养殖密度过大、环境温度过高等因素会加剧肉鸭氧化应激,破坏鸭肉品质[5,20]。禽类动物的抗氧化系统由一系列抗氧化酶组成,维持机体氧化还原平衡[21]。MDA是脂类物质过氧化反应的终产物,常被用作评价氧化应激的标志物[22]。本研究中,FRS组试验鸭胸肌抗氧化酶活性和T-AOC显著高于CFS组,但2组间胸肌MDA含量无显著差异。该结果提示,尽管2种养殖模式下临武鸭应激程度无明显差异,但FRS比CFS提高了临武鸭自身的抗氧化能力。然而,前人在北京鸭上的研究发现,相比带运动场和池塘的圈舍养殖模式,无运动场和池塘的室内圈舍养殖模式提高了鸭肉中抗氧化酶活性和MDA含量,表现出明显的氧化应激反应[23]。该不同结果可能是由于临武鸭与北京鸭对生长环境的适应程度差异造成。

3.3 养殖模式对临武鸭肉品质的影响

肉品质是消费者挑选肉类产品的重要考察因素,包括肉色、嫩度等特征指标。本研究发现,与CFS组相比,FRS组胸肌a*值和剪切力更高,胸肌L*值、b*值和滴水损失更低。因此,FRS组胸肌肉色更红,嚼劲和多汁性更好,更受消费者青睐。L*值差异可能是由于CFS组试验鸭胸肌水分含量比FRS组高;而a*值和b*值的差异是由于2种养殖模式下鸭肉抗氧化性能不同,肉中肌红蛋白转变为高铁肌红蛋白(metmyoglobin,MetMB)引起[24]。该结果与前人研究结果相似,Bai等[1]研究发现,地面平养鸭比笼养鸭肉品质更佳,表现为肉色更好,剪切力更高;Wang等[25]也发现,与笼养肉鸭相比,网上平养肉鸭胸肌L*值和滴水损失显著降低,剪切力显著提高。

3.4 养殖模式对临武鸭胸肌蛋白质结构的影响

本研究蛋白质组学分析结果显示,FRS组和CFS组胸肌蛋白质谱存在差异。DAPs功能和代谢通路分析进一步表明,甘氨酸、丝氨酸和苏氨酸代谢以及半胱氨酸和蛋氨酸代谢是影响2组鸭肉品质的关键代谢通路。甘氨酸、丝氨酸和苏氨酸代谢为蛋白质、核酸和脂质合成提供前体物质;半胱氨酸和蛋氨酸是禽类生长的必需氨基酸,其代谢影响禽肉品质和口感。BPGM、PHGDH、PSPH和LDHA、ENOPH1、BCAT1、PHGDH分别是甘氨酸、丝氨酸和苏氨酸代谢通路以及半胱氨酸和蛋氨酸代谢通路的DAPs,且与胸肌肉品质和抗氧化相关指标存在显著相关性。BPGM是调节3-磷酸甘油酸参与丝氨酸生物合成的变位酶,可通过降低血红蛋白对氧气的吸附能力影响肉色[26]。PHGDH催化丝氨酸合成,对肌肉发育和代谢有重要作用[27]。López-Pedrouso等[28]研究发现,PHGDH与马肉的肉色有显著相关性,与本研究结果相似。LDHA是一类催化丙酮酸转化为乳酸的烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NAD)依赖性激酶,可减少肉中MetMB含量,改善肉色;此外,LDHA分子还拥有大量疏水基团,能够减少水分子的吸附,进而影响肌肉保水性能[29]。ENOPH1是蛋氨酸修复重建途径的一部分,在调节氧化应激反应中起重要作用[30]。BCAT1调控肌肉脂质代谢,同时还通过激活哺乳动物雷帕霉素靶蛋白(mTOR)信号通路减少活性氧簇分子生成,促进肌细胞生长[31]。本研究中,FRS组胸肌ENOPH1和BCAT1含量高于CFS组,可能是其抗氧化能力较高的原因之一。

3.5 养殖模式对临武鸭肠道菌群结构的影响

本研究通过16S rDNA测序技术考察不同养殖模式下临武鸭盲肠食糜菌群结构,发现CFS组试验鸭盲肠菌群α多样性高于FRS组。该结果与前人研究结果[32]不同,其可能原因是本试验中试验鸭育雏阶段(1~27日龄)在保温室内网上养殖,其生长环境与CFS相似;但FRS与育雏阶段的生长环境有明显变化,造成肠道菌群多样性下降。另外,与FRS组相比,CFS组试验鸭盲肠中厚壁菌门相对丰度显著降低,拟杆菌门相对丰度显著提高。厚壁菌门与拟杆菌门比例(F/B)是判断菌群失调的特征指标。前人研究发现,盲肠F/B降低是肉鸡木质化胸肉的重要标志[33]。本研究中,CFS组试验鸭盲肠菌群F/B低于FRS组,可能引起肠道炎症,降低营养物质的代谢和吸收,进而影响鸭肉品质[34]

3.6 关键肠道菌群对肉品质的影响

肠道菌群通过“肠肌轴”影响肌肉品质。前人将肌肉生长抑制素缺失猪的粪菌移植给小鼠,引起小鼠快缩型肌纤维选择性肥大,为“肝肌轴”理论提供了直接佐证[35]。本研究中共发现40种肠道菌属的相对丰度与鸭肉品质相关指标具有显著相关性。其中罕见小球菌属(Subdoligranulum)和Colidextribacter可提高抗氧化酶活性[36-37],两者在FRS组试验鸭盲肠中相对丰度高于CFS组,可能增强了FRS组胸肌抗氧化性能。布劳特氏菌属可合成乙酸,通过激活肝脏游离脂肪酸受体2(FFAR2)信号改善葡萄糖和脂质平衡,降低脂肪沉积,提高FRS组胸肌肉品质[38]。另枝菌属、瘤胃球菌属扭链群和梭菌纲vadinBB60群(Clostridia_vadinBB60_group)被证明参与调控脂代谢并提高寄主脂肪沉积[39-41],可能引起CFS组试验鸭腹脂率提高。理研菌科RC9肠道群可通过上调棕榈酸含量,下调硬脂酸和油酸含量,影响猪肉脂代谢[42]。考拉杆菌属部分菌种可抑制莽草酸合成,造成骨骼肌含量和功能逐渐减少,导致肌少症发生[43]。本团队前期研究迷迭香提取物对临武鸭肉品质的影响也发现,Lachnoclostridium相对丰度与胸肌蒸煮损失呈显著正相关,与抗氧化性能呈显著负相关[44],这与本研究结果一致。因此,上述菌群可能是影响临武鸭肉品质的关键肠道菌群。

4 结论

本研究基于多组学技术探究了FRS和CFS下临武鸭生长性能、肉品质、肌肉蛋白质和肠道菌群的差异,结果发现CFS提高了临武鸭生长性能和胸肌产量;但FRS改善了临武鸭肉品质,如提高肉色a*值、剪切力和抗氧化性能,降低滴水损失。另外,不同养殖模式改变了临武鸭胸肌蛋白质和盲肠菌群结构。通过TMT定量蛋白质组学分析发现,2种养殖模式临武鸭胸肌存在646种DAPs,其中BPGM、PHGDH、PSPH、LDHA、ENOPH1和BCAT1可能通过甘氨酸、丝氨酸和苏氨酸代谢通路以及半胱氨酸和蛋氨酸代谢通路影响临武鸭胸肌肉品质。16S rDNA测序分析发现,2种养殖模式临武鸭盲肠存在114种差异微生物,其中差异菌属46种,且其中40种差异菌属与肉品质相关指标有显著相关性,可能是影响临武鸭肉品质的关键肠道菌群。本研究为解析养殖模式对禽肉品质影响提出了新的见解,为创新鸭养殖模式和提升鸭肉品质提供了参考。
[1]
BAI H, YANG B, DONG Z, et al. Research note:effects of cage and floor rearing systems on growth performance,carcass traits,and meat quality in small-sized meat ducks[J]. Poultry Science, 2022, 101(1):101520.

[2]
MI J D, WANG H L, CHEN X H, et al. Lack of access to an open water source for bathing inhibited the development of the preen gland and preening behavior in Sanshui white ducks[J]. Poultry Science, 2020, 99(11):5214-5221.

[3]
ZHANG T, CHEN C, XIE K Z, et al. Current state of metabolomics research in meat quality analysis and authentication[J]. Foods, 2021, 10(10):2388.

[4]
HE J, ZHENG H Y, PAN D D, et al. Effects of aging on fat deposition and meat quality in sheldrake duck[J]. Poultry Science, 2018, 97(6):2005-2010.

[5]
NASR M A F, ALKHEDAIDE A Q, RADWAN M M E, et al. Growth,carcass parameters,biochemical and oxidative stress indices,and meat traits of duck breeds under different stocking densities[J]. Poultry Science, 2022, 101(9):101992.

[6]
ZHANG L L, LI L, XIN Q W, et al. Metabolomic characterization of Liancheng white and cherry valley duck breast meat and their relation to meat quality[J]. Poultry Science, 2023, 102(11):103020.

[7]
ZHAO Y, LI X H, SUN S W, et al. Protective role of dryland rearing on netting floors against mortality through gut microbiota-associated immune performance in Shaoxing ducks[J]. Poultry Science, 2019, 98(10):4530-4538.

[8]
HUO W R, WENG K Q, GU T T, et al. Effects of integrated rice-duck farming system on duck carcass traits,meat quality,amino acid,and fatty acid composition[J]. Poultry Science, 2021, 100(6):101107.

[9]
LIU Y, LIN Q, HUANG X, et al. Effects of dietary ferulic acid on the intestinal microbiota and the associated changes on the growth performance,serum cytokine profile,and intestinal morphology in ducks[J]. Frontiers in Microbiology, 2021,12:698213.

[10]
湖南省质量技术监督局.临武鸭营养需要:DB43/T 898—2014[S]. 长沙: 湖南省质量和标准化研究院, 2014.

Hunan Bureau of Quality and Technical Supervision.Nutrient requirements of Linwu duck:DB43/T 898—2014[S]. Changsha: Hunan Institute of Quality and Standardization, 2014. (in Chinese)

[11]
中国农业科学院北京畜牧兽医研究所/畜禽营养与饲养全国重点实验室, 中国饲料数据库情报网中心,国家农业科学数据中心(动物科学).中国饲料成分及营养价值表(2024年第35版)制订说明[J]. 中国饲料, 2024(21):181.

Institute of Animal Science of CAAS/State Key Laboratory of Animal Nutrition and Feeding,China Feed Database Information Network Center, National Agricultural Science Data Center (Animal Science). Introduction of Tables of Feed Composition and Nutritive Values in China (thirty-fifth edition,2024)[J]. China Feed, 2024(21):181. (in Chinese)

[12]
国家市场监督管理总局, 中国国家标准化管理委员会.饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[13]
国家市场监督管理总局, 中国国家标准化管理委员会.饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[14]
国家市场监督管理总局, 中国国家标准化管理委员会.饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of phosphorus in feeds-spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
国家市场监督管理总局, 国家标准化管理委员会.饲料中粗纤维的含量测定:GB/T 6434—2022[S]. 北京: 中国标准出版社, 2022.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of crude fiber content in feeds:GB/T 6434—2022[S]. Beijing: Standards Press of China, 2022. (in Chinese)

[16]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会.饲料中粗脂肪的测定:GB/T 6433—2006[S]. 北京: 中国标准出版社, 2006.

General Administration of Quality Supervision,Inspection and Quarantine of the People's Republic of China, Standardization Administration of the People's Republic of China.Determination of crude fat in feeds:GB/T 6433—2006[S]. Beijing: Standards Press of China, 2006. (in Chinese)

[17]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会.饲料中水分的测定:GB/T 6435—2014[S]. 北京: 中国标准出版社, 2014.

General Administration of Quality Supervision,Inspection and Quarantine of the People's Republic of China, Standardization Administration of the People's Republic of China.Determination of moisture in feedstuffs:GB/T 6435—2014[S]. Beijing: Standards Press of China, 2014. (in Chinese)

[18]
中华人民共和国农业部.肉嫩度的测定剪切力测定法:NY/T 1180—2006[S]. 北京: 中国标准出版社, 2006.

Ministry of Agriculture of the People's Republic of China.Determination of meat tenderness shear force method:NY/T 1180—2006[S]. Beijing: Standards Press of China, 2006. (in Chinese)

[19]
宋佳雪, 王宝维, 张名爱, 等. 高负载硒植物乳杆菌及其后生元对肉鸭生长性能、屠宰性能、血清脂质指标、抗氧化能力及胸肌肉品质的影响[J]. 动物营养学报, 2025, 37(1):365-374.

SONG J X, WANG B W, ZHANG M A, et al. Effects of Lactobacillus plantarum and its postbiotics with high-load selenium on growth performance,slaughter performance,serum lipid indexes,antioxidant capacity and breast muscle quality of meat ducks[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):365-374. (in Chinese)

[20]
HE J, XIA C L, HE Y X, et al. Proteomic responses to oxidative damage in meat from ducks exposed to heat stress[J]. Food Chemistry, 2019,295:129-137.

[21]
SURAI P F, KOCHISH I I, FISININ V I, et al. Antioxidant defence systems and oxidative stress in poultry biology:an update[J]. Antioxidants, 2019, 8(7):235.

[22]
NASR M A F, ALKHEDAIDE A Q, RAMADAN A A I, et al. Potential impact of stocking density on growth,carcass traits,indicators of biochemical and oxidative stress and meat quality of different broiler breeds[J]. Poultry Science, 2021, 100(11):101442.

[23]
ABO GHANIMA M M, EL-EDEL M A, ASHOUR E A, et al. The influences of various housing systems on growth,carcass traits,meat quality,immunity and oxidative stress of meat-type ducks[J]. Animals, 2020, 10(3):410.

[24]
SUMAN S P, JOSEPH P. Myoglobin chemistry and meat color[J]. Annual Review of Food Science and Technology, 2013,4:79-99.

[25]
WANG Z, ZHU C, LIU H, et al. Effects of different rearing systems on growth performance,carcass traits,meat quality and serum biochemical parameters in Gaoyou ducks[J]. Animal Production Science, 2023, 63(7):681-688.

[26]
ZHAN H W, XIONG Y C, WANG Z C, et al. Integrative analysis of transcriptomic and metabolomic profiles reveal the complex molecular regulatory network of meat quality in Enshi black pigs[J]. Meat Science, 2022,183:108642.

[27]
MÄNTYSELKÄ S, KOLARI K, BAUMERT P, et al. Serine synthesis pathway enzyme PHGDH is critical for muscle cell biomass,anabolic metabolism,and mTORC1 signaling[J]. American Journal of Physiology:Endocrinology and Metabolism, 2024, 326(1):E73-E91.

[28]
LÓPEZ-PEDROUSO M, LORENZO J M, CITTADINI A, et al. A proteomic approach to identify biomarkers of foal meat quality:a focus on tenderness,color and intramuscular fat traits[J]. Food Chemistry, 2023, 405( Pt A):134805.

[29]
GAGAOUA M, TERLOUW E M C, PICARD B. The study of protein biomarkers to understand the biochemical processes underlying beef color development in young bulls[J]. Meat Science, 2017,134:18-27.

[30]
BARTH A, BILKEI-GORZO A, DREWS E, et al. Analysis of quantitative trait loci in mice suggests a role of Enoph1 in stress reactivity[J]. Journal of Neurochemistry, 2014, 128(6):807-817.

[31]
ZHANG T, YU B J, CAI Z Y, et al. Regulatory role of N6-methyladenosine in intramuscular fat deposition in chicken[J]. Poultry Science, 2023, 102(10):102972.

[32]
LI T, WANG P, ZHI Z, et al. Free-caged rearing modes regulate chicken intestinal metabolism by influencing gut microbial homeostasis[J]. Poultry Science, 2025, 104(1):104381.

[33]
KANG K L, ZHOU N X, PENG W S, et al. Multi-omics analysis of the microbiome and metabolome reveals the relationship between the gut microbiota and wooden breast myopathy in broilers[J]. Frontiers in Veterinary Science, 2022,9:922516.

[34]
STOJANOV S, BERLEC A, ŠTRUKELJ B. The influence of probiotics on the firmicutes/bacteroidetes ratio in the treatment of obesity and inflammatory bowel disease[J]. Microorganisms, 2020, 8(11):1715.

[35]
LUO Z B, HAN S Z, YIN X J, et al. Fecal transplant from myostatin deletion pigs positively impacts the gut-muscle axis[J]. eLife, 2023,12:e81858.

[36]
GE C Y, LUO X Y, WU L C, et al. Plant essential oils improve growth performance by increasing antioxidative capacity,enhancing intestinal barrier function,and modulating gut microbiota in muscovy ducks[J]. Poultry Science, 2023, 102(8):102813.

[37]
ZHANG P G, JIANG G Y, WANG Y B, et al. Maternal consumption of L-malic acid enriched diets improves antioxidant capacity and glucose metabolism in offspring by regulating the gut microbiota[J]. Redox Biology, 2023,67:102889.

[38]
AOKI R, ONUKI M, HATTORI K, et al. Commensal microbe-derived acetate suppresses NAFLD/NASH development via hepatic FFAR2 signalling in mice[J]. Microbiome, 2021, 9(1):188.

[39]
TANG S, XIN Y, MA Y L, et al. Screening of microbes associated with swine growth and fat deposition traits across the intestinal tract[J]. Frontiers in Microbiology, 2020,11:586776.

[40]
LYU W T, LIU X T, LU L Z, et al. Cecal microbiota modulates fat deposition in Muscovy ducks[J]. Frontiers in Veterinary Science, 2021,8:609348.

[41]
WEN C L, GOU Q L, GU S, et al. The cecal ecosystem is a great contributor to intramuscular fat deposition in broilers[J]. Poultry Science, 2023, 102(4):102568.

[42]
SEBASTIÀ C, FOLCH J M, BALLESTER M, et al. Interrelation between gut microbiota,SCFA,and fatty acid composition in pigs[J]. mSystems, 2024, 9(1):e0104923.

[43]
HE Y L, CUI W P, FANG T Y, et al. Metabolites of the gut microbiota may serve as precise diagnostic markers for sarcopenia in the elderly[J]. Frontiers in Microbiology, 2023,14:1301805.

[44]
LIU Y, LI C, HUANG X, et al. Dietary rosemary extract modulated gut microbiota and influenced the growth,meat quality,serum biochemistry,antioxidant,and immune capacities of broilers[J]. Frontiers in Microbiology, 2022,13:1024682.

Outlines

/