RESEARCH PAPER

Effects of Rumen Microbiota Transplantation on Intestinal Immune Function in Newborn Lambs

  • FU Lin ,
  • ZHANG Li ,
  • ZENG Yu ,
  • ZHOU Jia ,
  • HUANG Dejun ,
  • WANG Gaofu ,
  • DONG Xianwen , **
Expand
  • Chongqing Academy Animal Sciences, Chongqing 402460, China
**professor, E-mail:

* Contributed equally

Received date: 2025-05-30

  Online published: 2025-11-14

Abstract

This study aimed to investigate the effects of rumen microbiota transplantation on intestinal inflammation and barrier function in newborn lambs during the first 15 days of life. In this study, twenty-four Youzhou dark newborn lambs were randomly divided into three groups after receiving colostrum within 48 h from their mothers. Then, 20 mL active rumen fluid (RF group), sterilized rumen fluid (ARF group), and saline (CON group) were inoculated for 5 days from days 3 to 7 and slaughtered on day 16 after birth. The results showed that: 1) compared with the CON group, no diarrhea occurred among the lambs of the RF group and the ARF group. The mucosal structure of the colonic tissue was intact, and only mild neutrophil infiltration and epithelial cell shedding were observed. 2) Compared with the CON group, the contents of serum anti-inflammatory factors interleukin-10 (IL-10), interleukin-2 (IL-2), immunoglobulin A (IgA), and immunoglobulin G (IgG) in the RF group were significantly increased (P<0.05), while the content of pro-inflammatory factor interleukin-22 (IL-22) was significantly decreased (P<0.05). In the ARF group, the content of serum interleukin-1β (IL-1β) was significantly decreased (P<0.05), and the contents of serum IL-10, IL-2, IgA, and tumor necrosis factor-α (TNF-α) were significantly increased (P<0.05). There were no significant differences in the contents of serum interleukin-8 (IL-8), interleukin-6 (IL-6), interferon-γ (IFN-γ), and immunoglobulin M (IgM) among groups (P>0.05). 3) Compared with the CON group, the relative expression levels of tight junction protein zonula occludens-1 (ZO-1), IL-10, interleukin-20 (IL-20), interleukin-26 (IL-26), IL-22 and its receptors interleukin-22 receptor subunit α1 (IL22RA1) and interleukin-10 receptor β subunit (IL10RB), as well as genes in the tumor necrosis factor/nuclear factor-κB (TNF/NF-κB) signaling pathway were significantly upregulated in the RF group (P<0.05). The relative expression levels of IL-10, IL10RB, TNF and nuclear factor-κB kinase inhibitor β subunit (IKBKB) genes in the ARF group were significantly higher than those in the RF group (P<0.05). Compared with the CON group, although the relative expression levels of colonic tight junction proteins ZO-1, claudin-1 and occludin in the RF and ARF groups were increased, there was no statistical significance (P>0.05). It is worth noting that the relative expression level of nuclear factor-κB (NF-κB) protein in the ARF group was significantly higher than that in the CON group (P<0.05), while there was no significant difference in the relative expression level of phosphorylated nuclear factor-κB (p-NF-κB) protein (P>0.05).4) In the RF group, the serum IL-22 content was significantly positively correlated with the relative abundance of potential pathogenic bacteria (such as Fusobacterium, Bergeyella, and Filobacterium) (P<0.05), while it was significantly negatively correlated with the relative abundance of some potential probiotics (e.g., Rikenellaceae_RC9_gut_group) (P<0.05). Additionally, the contents of anti-inflammatory factors (IL-10, IL-2, IgA) were significantly negatively correlated with the relative abundance of Akkermansia (P<0.05), and significantly positively correlated with the relative abundance of Phascolarctobacterium (P<0.05). In conclusion, rumen microbiota transplantation does not cause diarrhea in lambs. It can optimize the intestinal immune homeostasis of newborn lambs by regulating the composition of intestinal flora, enhancing barrier function, and balancing the pro-/anti-inflammatory network, providing a potential intervention strategy for their early healthy development.

Cite this article

FU Lin , ZHANG Li , ZENG Yu , ZHOU Jia , HUANG Dejun , WANG Gaofu , DONG Xianwen . Effects of Rumen Microbiota Transplantation on Intestinal Immune Function in Newborn Lambs[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7754 -7766 . DOI: 10.12418/CJAN2025.630

幼龄反刍动物作为畜牧业可持续发展的核心后备力量,其健康培育直接决定了成年家畜的生产性能与产品质量,是保障牛羊养殖业经济效益和产业韧性的关键环节。研究显示,幼龄反刍动物早期瘤胃微生物的定植能够直接影响宿主健康,提高羔羊生长性能[1],提高断奶前羔羊的消化率,减少断奶应激[2],显著降低犊牛腹泻发生率[3]。更重要的是,这一过程虽然可能暂时影响羔羊胃肠道完整性和免疫力,但能显著加速消化系统微生物的成熟[4],对宿主免疫系统的发育具有深远影响。随着抗生素使用限制政策的实施,探索微生物定向调控技术对实现绿色养殖具有重要意义。因此,深入探讨瘤胃微生物早期定植的免疫调控机制,对保障幼龄反刍动物健康生长、提高生产性能具有重要的理论和实践价值。
早期微生物定植是启动肠道黏膜系统先天免疫和获得免疫的关键生物学事件。研究表明,在模式动物如小白鼠、大白鼠及猪中,肠道微生物的有效定植对于动物肠道早期黏膜免疫形成至关重要[5-7]。而以新生羔羊为模型动物的研究发现,通过口服方式在新生羔羊1日龄时补喂健康成年绵羊瘤胃液,可以显著提高24日龄羔羊小肠黏膜蛋白中的免疫球蛋白A(IgA)含量[8]。移植瘤胃液后,羔羊血清中IgA、白细胞介素-6(IL-6)、α干扰素和D-乳酸含量均显著升高[4]。另外,瘤胃分离菌拜氏梭菌R8的移植不仅能抑制埃希氏-志贺氏菌属(Escherichia-Shigella)的生长,还能刺激乳杆菌属增殖,从而塑造更健康的肠道微生物区系,增强羔羊的肠道屏障功能并缓解炎症反应[9]。结肠作为肠道黏膜免疫系统的核心枢纽,在先天免疫(非特异性防御)和获得性免疫(特异性应答)中发挥关键作用,其菌群-免疫互作机制与炎症性肠病等病理过程密切相关[10-11]。然而,现有研究存在3个重要局限:首先,多数研究聚焦小肠而忽视结肠免疫;其次,缺乏微生物组与免疫指标的关联分析;第三,作用机制解析多停留在现象描述层面。
基于本课题组前期研究发现,给新生羔羊移植成年山羊瘤胃液,出生后15 d粪便微生物的丰度和数量显著变化,其中潜在益生菌[理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)]相对丰度增加,而潜在致病菌[阿克曼菌属(Akkermansia)和Escherichia-Shigella]相对丰度减少,这种菌群结构的优化改善了羔羊的健康状况[12]。在此基础上,本试验提出创新性科学假设:瘤胃微生物早期定植可能通过“微生物-肠-免疫轴”调控结肠免疫功能。本研究将重点解决3个关键问题:1)移植瘤胃液对结肠形态结构和局部免疫微环境的影响;2)关键免疫基因/蛋白的表达调控规律;3)特定微生物种群与免疫指标的因果关系,从而突破现有研究关注单一指标的局限。本研究不仅致力于探究瘤胃微生物早期定植的免疫学机制,以提高羔羊成活率和生长性能为目标,还可在应用上研发基于特定功能菌群的微生态制剂,为构建“无抗养殖”技术体系提供核心技术支撑,为构建低碳环保的健康养殖体系奠定理论基础。

1 材料与方法

1.1 试验动物与饲粮

本试验于2021年6月在重庆酉阳县酉州乌羊保种场进行。本试验获得重庆市畜牧科学院动物伦理委员会的批准和监督(批准编号:XKY-20180716)。
试验选取24只初生羔羊为试验动物,选取6只年龄、体重[(28.00±2.00) kg]相近的成年酉州乌羊(公母各占1/2)作为瘤胃液供体。羔羊出生48 h摄入初乳后与母羊隔离,进行单笼人工饲喂。供体羊和母羊的饲粮保持一致,参照《肉羊营养需要量》(NY/T 816—2021)[13]配制全混合日粮(TMR),其组成及营养水平见表1
表1 全混合日粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of TMR (air-dry basis)%

项目Items 含量Content
原料Ingredients
花生秧Peanut vine 35.0
全株玉米青贮Whole corn silage 25.0
玉米Corn 20.0
豆粕Soybean meal 14.0
小麦麸Wheat bran 1.0
棉籽粕Cottonseed meal 0.9
碳酸氢钠NaHCO3 1.0
磷酸氢钙CaHPO4 1.0
碳酸钙CaCO3 0.6
氯化钠NaCl 0.5
预混料Premix1) 1.0
合计Total 100.0
营养水平Nutrient levels2)
干物质DM 76.19
消化能DE/(MJ/kg) 11.11
粗蛋白质CP 14.00
中性洗涤纤维NDF 36.22
酸性洗涤纤维ADF 24.44
钙Ca 0.94
总磷TP 0.45

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 13 000 IU,VD3 8 000 IU,VE 60 IU,Cu 16 mg,Fe (as ferrous sulfate) 221 mg,Mn (as manganese sulfate) 35 mg,Zn (as zinc sulfate) 50 mg,I (as potassium iodide) 0.5 mg,Se (as sodium selenite) 0.24 mg,Co(as cobalt chloride) 0.3 mg。

2)消化能参照《肉羊营养需要量》(NY/T 816—2021)[13]计算,其余为实测值。DE was calculated according to Nutrient Requirements of Meat Sheep (NY/T 816—2021)[13], while the others were measured values.

1.2 瘤胃液来源

晨饲前通过口腔导管采样器从供体羊瘤胃中采集瘤胃液,经4层纱布过滤去除颗粒残渣,通入CO2后,样品在39 ℃条件下保存不超过30 min,并立即作为新鲜接种物饲喂新生羔羊。
灭菌瘤胃液:将过滤的瘤胃液灭菌,条件为205.8 kPa,132 ℃,10 min。

1.3 试验设计

24只初生酉州乌羊羔羊出生后48 h内接收母羊初乳,并随机分为3组,每组8个重复,在出生后第3~7天每天分别灌喂20 mL活性瘤胃液(RF组)、灭菌瘤胃液(ARF组)及生理盐水(CON组),试验期15 d。所有羔羊在出生第16天屠宰进行分析。

1.4 饲养管理

试验开始前对圈舍进行清洁、消毒。试验羊登记耳号,每只羔羊进行单笼饲养。羔羊的饲喂方式为人工采集母乳,经高温高压灭菌(205.8 kPa,132 ℃,10 min)后进行人工饲喂。每只羔羊母乳饲喂量为400 mL/d,分4次(08:00、12:00、16:00和20:00)进行,每次100 mL。灌喂试验于羔羊出生的第3~7天进行,于当天第1次母乳饲喂2 h后,通过25 cm软管和20 mL注射器进行灌注,每天1次,每次为20 mL。

1.5 样品采集

羔羊出生第16天清晨进行颈静脉采血,血样迅速4 ℃保存,而后700×g离心15 min,分离血清,-20 ℃冻存,用于血清免疫因子含量的测定。采血完成后按照常规屠宰方法进行屠宰,采集后肠内容物,置于液氮罐中保存,并进行16S rRNA测序,具体方法参考课题组已发表文章[12]。沿肠系膜纵向剖开采集结肠,预冷磷酸盐缓冲液(PBS)轻柔冲洗肠腔内容物,浸入4%多聚甲醛,4 ℃固定24~48 h,用于形态学研究。用于实时荧光定量PCR和Western blot分析的样品迅速置于液氮罐中,带回实验室-80 ℃保存备用。

1.6 指标测定与方法

1.6.1 饲粮营养成分测定

饲粮中干物质(DM)、粗蛋白质(CP)、钙(Ca)和总磷(TP)含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018中方法进行测定,中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量参照Van Soest等[14]的方法进行测定。

1.6.2 羔羊腹泻率测定

计算整个动物饲喂试验期间羔羊腹泻率,计算公式如下:
腹泻率(%)=100×腹泻头数/每组总羔羊数。

1.6.3 血清免疫因子含量测定

血清免疫因子白细胞介素-22(IL-22)、白细胞介素-10(IL-10)、白细胞介素-17(IL-17)、白细胞介素-1β(IL-1β)、白细胞介素-8(IL-8)、白细胞介素-6(IL-6)、白细胞介素-2(IL-2)、肿瘤坏死因子-α(TNF-α)、干扰素-γ(IFN-γ)、免疫球蛋白M(IgM)、免疫球蛋白G(IgG)和免疫球蛋白A(IgA)含量采用相应酶联免疫吸附试验法的试剂盒(美国BioLegend)检测,测试方法和操作步操按照相应说明书进行。

1.6.4 肠道形态学分析

将结肠组织固定18~24 h后,置于流水中冲洗12 h,经梯度浓度酒精充分脱水后,投入二甲苯进行透明10~15 min。然后在60 ℃石蜡中浸泡,而后组织定向包埋。将组织连续切片(厚度3~5 μm),裱片于防脱载玻片,烤片后脱蜡水化,用苏木精-伊红(HE)染色法染色后进行显微结构观察和图形采集。

1.6.5 实时荧光定量PCR测定

按照Trizol法提取总RNA,使用NanoDrop 1000 ND-2000分光光度计(美国Thermo Scientific)检测各样本RNA质量及浓度。按照PrimeScript RT reagent Kit with gDNA Eraser试剂盒(大连TaKaRa)说明书进行cDNA合成。实时荧光定量PCR反应按SYBR Premix Ex Taq试剂盒(大连TaKaRa)操作。将cDNA用焦碳酸二乙酯(DEPC)水稀释至50 ng/μL,取2 μL稀释后的cDNA加入20 μL反应体系:2 μL稀释后的cDNA(50 ng/μL),10.0 μL的2×SYBR Premix Ex Taq(Tli RNasesH Plus),10 μmol/L正向和反向引物各0.8 μL,0.4 μL的50×ROX Reference Dye Ⅱ及6.0 μL的RNase free水。所有反应在QuantStudio 6 Flex系统(美国Applied Biosystems)上按以下程序运行:95 ℃ 30 s;95 ℃ 5 s→60 ℃ 34 s,40个循环。引物信息见表2,以β-肌动蛋白(β-actin)作为内参基因,对目的基因相对表达量进行标准化,采用2-ΔΔCt法计算目的基因相对表达量。
表2 引物信息

Table 2 Primer information

项目
Items
NCBI登录号
NCBI accession number
上游引物
Forward primer (5'—3')
下游引物
Reverse primer (5'—3')
白细胞介素-22
IL-22
NM_001285758.1 GAAGCCAAACTCCACAGTC TATGCTTGGAAGGTCTAGC
白细胞介素-22
受体亚基α1
IL22RA1
XM_018055820.1 CTCCCTACGAGTGCCAAGTGA GGCGGCTTGGTGATGTATCTG
白细胞介素-10
IL-10
XM_005690416.3 CGGAAATGATCCAGTTTTACCT CCCTCTCTTGGAGCATATTGA
白细胞介素-20
IL-20
XM_005690444.2 GCTAGACATTCTCTTGCGATG CAAACAGACAGCGGTTCA
白细胞介素-26
IL-26
XM_005680207.2 CTTCATGGAAGATGTTTTTGGT TGTTCTTTTCATCCTGGTAATG
白细胞介素-10
受体β亚基
IL10RB
XM_018046602.1 GACAGCATCCACACCACCAAGG GACGGACCATCAGGGAAATCACAG
闭锁小带蛋白-1
ZO-1
XM_018066116.1 TCCTGATCCTGAACCTGTGTCTGAG CTCCCGACTGGCACTCCTATCTC
闭合蛋白
Occludin
XM_018065677.1 GCCTGTGTTGCCTCCACTCTTG CCGTAGCCATAACCATAGCCATAGC
封闭蛋白-1
Claudin-1
XM_005675123.3 ACAGTGTGAGTTTGGGCAAGGC GTAGGCAGGTCAGGCATTACAATCC
肿瘤坏死因子
TNF
XM_005696606.3 TCTGGGCAGGTCTACTTTGGGATC GGGATGAGGAGGGTCTGAAGGAG
肿瘤坏死因子受体
超家族成员1A
TNFRSF1A
XM_018062109.1 CTGGAGAGGAAGAGTCTTGGAGGAG CACACTACACGCAGACACACTACAC
Fas相关死亡
结构域蛋白
FADD
XM_018043148.1 GAGAAACCGCAGGCTCCACAAG GTTAGGAAGCAGCCAGCAGGATG
肿瘤坏死因子受体
相关因子2
TRAF2
XM_018044493.1 CGGCGTGTTCGTCTGGAAGATC TGTAGAAGGCTGGGGAGAAGATGG
TNFR1相关死亡
结构域蛋白
TRADD
XM_018062109.1 GTTCAGAGTGTCAGGAGGCAAGATG GTGAGCGTAGGCATCGGACAAG
核因子-κ激酶抑制
因子γ亚基
IKBKG
XM_013976822.2 GCAGCGGGCAAGAACAAAGATTAC TGAGCCTTGTGTGTCCAGCATTC
核因子-κ激酶抑制
因子β亚基
IKBKB
XM_018041970.1 GACTGTTGAACGAGCACGGGTAC GAAGGGAAGAGCGGGAGAGAGG
核因子-κB亚基1
NFKB1
XM_018049264.1 TGTGGTGGAGGACTTGCTGAGG TGTGCTGCCTTCTTGTGCTTGAG
RELA原癌基因
RELA
XM_018043384.1 CCCTCCCAAAGCACGCACTTAC CCCAGGAAGACATCACCCAAAGAAG
β-肌动蛋白
β-actin
XM_018053818.1 CGCCAGAAGATGGAAAGC TGAACTCAGCATGGGACA

1.6.6 Western blot测定

使用放射性免疫沉淀分析缓冲液裂解液(含蛋白酶抑制剂和磷酸化蛋白酶抑制剂)裂解结肠匀浆组织,冰上孵育30 min;12 070×g、4 ℃离心15 min,取上清;使用BCA法测定蛋白浓度;加入蛋白上样缓冲液,95~100 ℃煮沸5 min使蛋白变性。将十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)分离胶(浓度12%)每孔加入30 μg蛋白样品,同时加入预染蛋白Marker,调节电压至80 V进行样品压缩,当溴酚蓝压缩成线状并靠近胶孔底部后调节电压至120 V,大约90 min后待溴酚蓝色线条抵达胶底部时停止电泳;电泳后,将胶浸泡于100%甲醇中浸泡激活,采用湿转法(100 V,60~90 min),将蛋白从胶转移至聚偏二氟乙烯(PVDF)膜,用5%脱脂牛奶室温封闭1 h,减少非特异性结合,接着使用稀释的一抗在4 ℃条件下孵育过夜,所用一抗包括:核因子-κB(NF-κB)p65(C22B4)兔源单克隆抗体(货号4764S,美国CST,1∶1 000稀释)、磷酸化NF-κB (p-NF-κB) p65(Ser536)抗体(货号AF2006,美国Affinity,1∶2 000稀释)、闭锁小带蛋白-1(ZO-1)兔/羊多克隆抗体(货号21773-1-AP,美国Proteintech,1∶2 000稀释)、闭合蛋白(Occludin)兔/羊多克隆抗体(货号27260-1-AP,美国Proteintech,1∶2 000稀释)、封闭蛋白-1(Claudin-1)兔/羊多克隆抗体(货号28674-1-AP,美国Proteintech,1∶1 000稀释)以及β-肌动蛋白兔单克隆抗体(货号4970S,美国CST,1∶5 000稀释),4 ℃孵育过夜,用TBST(Tris缓冲盐溶液+Tween 20,Tris-Buffered Saline with Tween 20)洗涤膜3次,每次5 min,然后与兔源IgG辣根过氧化物酶(HRP)标记二抗(货号7074S,美国CST,1∶5 000稀释)室温孵育1 h,TBST洗3次;滴加增强化学发光底物(ECL),在凝胶成像系统中曝光检测,并用ImageLab软件对目标条带进行光密度采集并进行相对定量。

1.7 数据分析

使用SPSS 22.0软件进行单因素方差分析并检验其显著性,结果均一化后用平均值和均值标准误(SEM)表示,P<0.05表示差异显著,P<0.01表示差异极显著。粪便微生物门水平和属水平细菌相对丰度来源于前期发表文章[12],其与血清免疫因子含量相关关系图的绘制在基迪奥云平台(https://www.omicshare.com/tools/)进行。

2 结果与分析

2.1 瘤胃微生物移植对羔羊腹泻率的影响

瘤胃微生物移植后,各组羔羊均未发生腹泻,表明瘤胃液移植未对肠道健康造成负面影响。

2.2 瘤胃微生物移植对羔羊血清免疫因子含量的影响

表3可知,与CON组相比,RF组羔羊血清中IL-10、IL-2、IgA、IgG含量显著升高(P<0.05),IL-22含量显著降低(P<0.05);ARF组羔羊血清中IL-10、IL-2、IgA、TNF-α含量显著升高(P<0.05),IL-1β含量显著降低(P<0.05);血清IL-8、IL-6、IFN-γ、IgM含量在各组间无显著差异(P>0.05)。
表3 瘤胃微生物移植对羔羊血清免疫因子含量的影响

Table 3 Effects of rumen microbiota transplantation on serum immune factor contents of lambs (n=8)

项目
Items
组别Groups SEM P
P-value
CON RF ARF
白细胞介素-22 IL-22/(pg/mL) 22.37b 14.94a 25.09b 2.314 0.001
白细胞介素-10 IL-10/(pg/mL) 37.55a 51.24b 51.54b 3.286 <0.001
白细胞介素-17 IL-17/(pg/mL) 29.92 28.05 24.61 2.066 0.052
白细胞介素-1β IL-1β/(pg/mL) 102.80b 107.80b 87.12a 5.253 0.002
白细胞介素-8 IL-8/(pg/mL) 205.10 201.30 203.90 10.530 0.937
白细胞介素-6 IL-6/(pg/mL) 103.60 101.20 95.90 10.360 0.754
白细胞介素-2 IL-2/(pg/mL) 733.00a 931.60b 1 006.00b 57.990 <0.001
肿瘤坏死因子-α TNF-α/(pg/mL) 111.20a 127.70ab 155.50b 11.660 0.004
干扰素-γ IFN-γ/(pg/mL) 376.00 469.20 450.30 39.500 0.066
免疫球蛋白M IgM/(mg/mL) 1 618.00 1 514.00 1 657.00 71.750 0.148
免疫球蛋白M IgG/(mg/mL) 5.06a 6.26b 5.50ab 0.459 0.049
免疫球蛋白M IgA/(mg/mL) 176.00a 215.30b 226.60b 14.390 0.005

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.3 瘤胃微生物移植对羔羊结肠组织形态学的影响

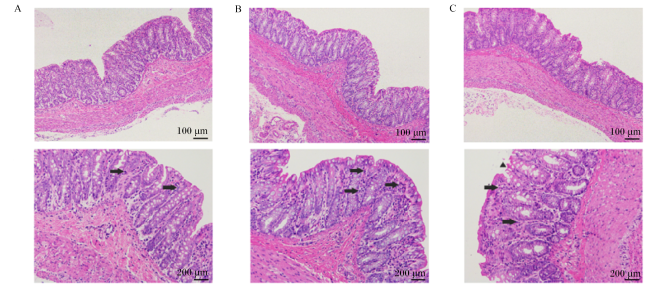
图1可知,各组结肠黏膜结构基本完整,仅ARF组出现少量上皮细胞脱落,但均无严重炎症反应,CON组和RF组固有层可见少量中性粒细胞浸润。结果提示,瘤胃液移植可能轻微激活局部免疫反应,但未引起显著病理损伤。
图1 瘤胃微生物移植对羔羊结肠组织形态学的影响

A:羔羊灌注生理盐水(CON组);B:羔羊灌注瘤胃液(RF组);C:羔羊灌注灭菌瘤胃液(ARF组)。箭头指的是中性粒细胞浸润,三角形指的是黏膜上皮细胞脱落。

Fig.1 Effects of rumen microbiota transplantation on colonic tissue morphology of lambs

A: lambs inoculated with sterilized physiological (CON group); B: lambs inoculated with ruminal fluid (RF group); C: lambs inoculated with autoclaved ruminal fluid (ARF group). Arrows indicate neutrophil infiltration, and triangles denote mucosal epithelial cell detachment.

2.4 瘤胃微生物移植对羔羊结肠免疫功能的影响

2.4.1 瘤胃微生物移植对羔羊结肠屏障功能基因相对表达量的影响

表4可知,与CON组相比,RF组和ARF组ZO-1基因相对表达量显著上调(P<0.05),ARF组Claudin-1基因相对表达量显著上调(P<0.05),Occludin基因相对表达量在各组间无显著差异(P>0.05)。
表4 瘤胃微生物移植对羔羊结肠屏障功能基因相对表达量的影响

Table 4 Effects of rumen microbiota transplantation on relative expression levels of barrier function genes in colon of lambs (n=3)

项目
Items
组别Groups SEM P
P-value
CON RF ARF
闭锁小带蛋白-1 ZO-1 1.00a 2.26b 2.23b 0.144 <0.001
封闭蛋白-1 Claudin-1 1.00a 1.52ab 1.87b 0.128 0.013
闭合蛋白Occludin 1.00 1.44 1.86 0.240 0.428

2.4.2 瘤胃微生物移植对羔羊结肠免疫细胞因子基因相对表达量的影响

表5可知,与CON组相比,RF组和ARF组结肠组织IL-10、白细胞介素-20(IL-20)、白细胞介素-26(IL-26)、IL-22及其受体白细胞介素-22受体亚基α1(IL22RA1)和白细胞介素-10受体β亚基(IL10RB)基因相对表达量都显著上调(P<0.05);ARF组结肠组织IL-10和IL10RB基因相对表达量显著高于RF组(P<0.05)。
表5 瘤胃微生物移植对羔羊结肠免疫细胞因子基因相对表达量的影响

Table 5 Effects of rumen microbiota transplantation on relative expression levels of immune cytokine genes in colon of lambs (n=3)

项目
Items
组别Groups SEM P
P-value
CON RF ARF
白细胞介素-22 IL-22 1.00a 3.21b 3.48b 0.446 0.038
白细胞介素-22受体亚基α1 IL22RA1 1.00a 3.71b 3.56b 0.304 <0.001
白细胞介素-10 IL-10 1.00a 2.41b 4.06c 0.340 <0.001
白细胞介素-20 IL-20 1.00a 2.20b 3.19b 0.275 0.002
白细胞介素-26 IL-26 1.00a 2.27b 2.62b 0.261 0.022
白细胞介素-10受体β亚基IL10RB 1.00a 2.33b 3.56c 0.307 0.002

2.4.3 瘤胃微生物移植对羔羊结肠TNF/NF-κB信号通路基因相对表达量的影响

表6可知,与CON组相比,RF组和ARF组结肠组织TNF/NF-κB信号通路基因如肿瘤坏死因子(TNF)、肿瘤坏死因子受体超家族成员1A(TNFRSF1A)、Fas相关死亡结构域蛋白(FADD)、TNFR1相关死亡结构域蛋白(TRADD)、核因子-κB激酶抑制因子γ亚基(IKBKG)、核因子-κB激酶抑制因子β亚基(IKBKB)和核因子-κB亚基1(NFKB1)基因相对表达量均显著上调(P<0.05),而ARF组TNFIKBKB基因相对表达量显著高于RF组(P<0.05)。
表6 瘤胃微生物移植对羔羊结肠TNF/NF-κB信号通路基因相对表达量的影响

Table 6 Effects of rumen microbiota transplantation on relative expression levels of TNF/NF-κB signaling pathway genes in colon of lambs (n=3)

项目
Items
组别Groups SEM P
P-value
CON RF ARF
肿瘤坏死因子TNF 1.00a 7.52b 12.66c 1.160 <0.001
肿瘤坏死因子受体超家族成员1A TNFRSF1A 1.00a 2.87b 3.41b 0.289 <0.001
Fas相关死亡结构域蛋白FADD 1.00a 2.57b 3.18b 0.288 0.007
肿瘤坏死因子受体相关因子2 TRAF2 1.00 1.24 1.05 0.091 0.555
TNFR1相关死亡结构域蛋白TRADD 1.00a 1.64b 1.80b 0.111 0.009
核因子-κB激酶抑制因子γ亚基IKBKG 1.00a 2.67b 2.60b 0.273 0.008
核因子-κB激酶抑制因子β亚基IKBKB 1.00a 1.72b 2.21c 0.135 <0.001
核因子-κB亚基1 NFKB1 1.00a 2.84b 3.08b 0.249 0.001
RELA原癌基因RELA 1.00a 2.43b 2.41b 0.168 <0.001

2.5 瘤胃微生物移植对羔羊结肠免疫相关蛋白相对表达量的影响

表7可知,与CON组相比,RF组和ARF组结肠紧密连接蛋白(ZO-1、Claudins和Occludin)相对表达量增加,但统计学差异不显著(P>0.05)。ARF组NF-κB蛋白相对表达量显著高于CON组(P<0.05),但p-NF-κB蛋白相对表达量无显著变化(P>0.05)。
表7 瘤胃微生物移植对羔羊结肠免疫相关蛋白相对表达量的影响

Table 7 Effects of rumen microbiota transplantation on relative expression levels of immune-related proteins in colon of lambs(n=3)

项目
Items
组别Groups SEM P
P-value
CON RF ARF
闭锁小带蛋白-1 ZO-1 1.00 1.14 1.07 0.168 0.958
封闭蛋白-1 Claudin-1 1.00 1.03 1.10 0.269 0.990
闭合蛋白Occludin 1.00 1.07 1.09 0.080 0.915
核因子-κB NF-κB 1.00a 1.32a 2.47b 0.276 0.041
磷酸化核因子-κB p-NF-κB 1.00 0.69 1.63 0.204 0.153

2.6 粪便微生物相对丰度与血清免疫指标的关联分析

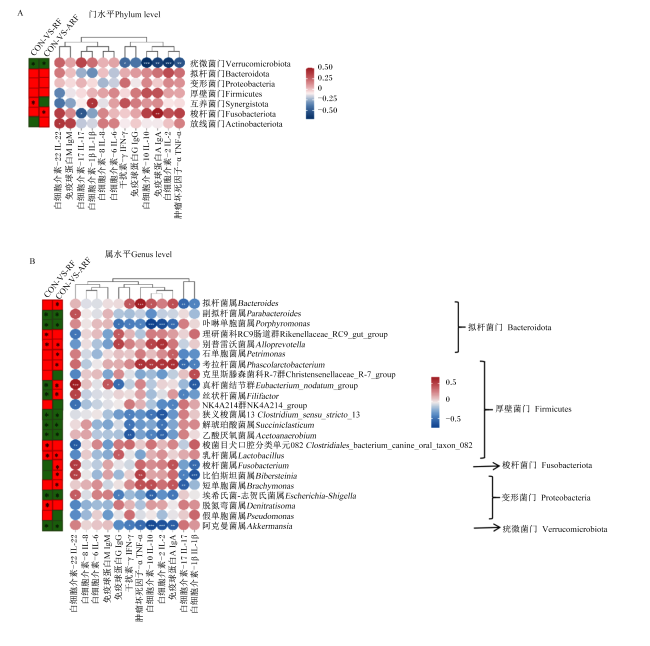
羔羊灌注生理盐水(CON组)、瘤胃液(RF组)、瘤胃液灭菌液(ARF组)后对粪便微生物的种类和相对丰度有显著影响[12],本研究将羔羊粪便门水平和属水平微生物相对丰度与血清免疫指标进行关联分析,结果见图2。血清IL-22含量和放线菌门(Actinobacteriota)、梭杆菌门(Fusobacterium)、比伯斯坦菌属(Bibersteinia)、丝状杆菌属(Filifactor)、真杆菌结节群(Eubacterium_nodatum_group)相对丰度呈显著正相关(P<0.05),而这些菌在RF组的相对丰度下调。同时,血清IL-22含量和Rikenellaceae_RC9_gut_group、NK4A214群(NK4A214_group)、梭菌目犬口腔分类单元082(Clostridiales_bacterium_canine_oral_taxon_082)相对丰度呈显著负相关(P<0.05),这些微生物在RF组的相对丰度呈上调趋势。血清抗炎因子IL-10、IL-2、IgA含量与疣微菌门(Verrucomicrobiota)和Akkermansia、卟啉单胞菌属(Porphyromonas)相对丰度呈显著负相关(P<0.05),其在RF组相对丰度显著下调;与袋鼠杆菌属(Phascolarctobacterium)相对丰度呈显著正相关(P<0.05),其相对丰度在RF组显著上调(P<0.05)。
图2 瘤胃微生物移植后羔羊粪便微生物相对丰度与血清免疫指标的相关关系

图最左侧红色方框代表微生物相对丰度上调,绿色方框代表微生物相对丰度下调。最左侧方框中*表示2组间微生物具有统计学差异(P<0.05)。图中红色圆圈代表正相关,蓝色圆圈代表负相关,颜色深浅表示相关系数大小。*表示显著相关(P<0.05),**表示极显著相关(P<0.01),***表示极显著相关(P<0.000 1)。

Fig.2 Correlation between relative abundance of fecal microbiota and serum immune indexes of lambs after rumen microbiota transplantation

The red box on the far left of the figure represents upregulation of microbial relative abundance, while the green box represents downregulation of microbial relative abundance. * in the leftmost box indicates that there is a statistical difference in microorganisms between the two groups (P<0.05). Red circles in the figure indicate positive correlations, and blue circles indicate negative correlations, with color intensity reflecting the magnitude of the correlation coefficient. * denotes a significant correlation (P<0.05), ** indicates a highly significant correlation (P<0.01), and *** represents an extremely significant correlation (P<0.0001).

3 讨论

3.1 瘤胃微生物移植对新生羔羊肠道健康的影响

本研究通过向新生羔羊移植成年山羊瘤胃液、灭菌瘤胃液及生理盐水,评估其对羔羊肠道健康的影响。结果显示,各组羔羊均未出现腹泻,结肠组织结构基本完整,仅ARF组有轻微上皮细胞脱落,表明移植处理并未引起显著肠道损伤。组织形态学分析显示,RF组和ARF组结肠固有层观察到少量中性粒细胞浸润,但浸润程度较轻,未伴随明显的炎症反应。中性粒细胞作为先天免疫的关键效应细胞,其募集通常与病原体识别或组织损伤相关[15]。本研究中有限中性粒细胞浸润可能提示瘤胃液微生物或其他成分(如细菌碎片、代谢产物)对免疫系统的适度刺激,而非致病性炎症。类似地,已有研究表明,益生菌植物乳杆菌ZLP001通过增强上皮防御功能和调节肠道微生物群来强化肠道屏障[16]。瘤胃微生物的某些成分(如脂多糖)可能被肠道免疫细胞识别,增强抗炎或促炎因子的平衡释放,从而调节免疫应答[17]。短链脂肪酸作为主要的微生物代谢物,在保持肠道屏障的完整性和调节宿主炎症反应方面也发挥着关键作用[18]。这些发现共同提示,瘤胃微生物移植可能通过适度地免疫刺激来增强宿主的肠道防御功能,而非引发致病性炎症。

3.2 瘤胃微生物移植羔羊血清免疫应答的特征及其与肠道菌群的关联

无菌动物或新生儿都表现出适应性黏膜免疫系统如[IgA、IL-17+CD4+T(Th17)细胞、B细胞]较少的特征,但这些在微生物定植后都能够快速恢复。本研究中,活性瘤胃液移植(RF组)显著升高羔羊血清IL-10、IL-2、IgA、IgG含量,ARF组则表现为血清IL-10、IL-2、IgA、TNF-α含量显著升高,同时IL-17、IL-1β含量显著降低。IL-10是一种关键的抗炎细胞因子,能够抑制过度炎症反应并维持免疫耐受[19]。IL-2在免疫应答中起关键作用,促进T细胞增殖和自然杀伤细胞(NK)活化,增强细胞免疫能力[20]。越来越多的研究显示,补充益生菌能够增加血清中抗炎因子(IL-10)的含量,降低促炎因子(IL-1β、IL-6、TNF-α)的含量[21-22]。活性微生物移植提高羔羊血清IgA含量的结果也和已有研究结果[4]一致。这些结果提示,活性微生物移植主要诱导抗炎反应和黏膜免疫,而灭菌处理保留了部分免疫调节成分(如耐热的微生物产物),但表现出更复杂的促/抗炎因子变化模式。本研究中,血清抗炎因子IL-10、IL-2、IgA含量和Akkermansia相对丰度呈显著负相关,与Phascolarctobacterium相对丰度呈显著正相关。Akkermansia被认为具有抗炎作用,可能诱导调节性免疫[23],这与宿主细菌感染状态有关[24]Phascolarctobacterium在胃肠中大量定植,可产生短链脂肪酸[25]。推测瘤胃液活性微生物移植能够通过重构肠道微生物,介导羔羊免疫细胞产生相应的抗炎和促炎因子网络,调节羔羊的免疫反应。值得注意的是,RF组血清IL-22含量显著降低。IL-22由适应性免疫系统和先天免疫系统的细胞释放,介导上皮组织的保护和再生,但也可以诱导促炎分子的表达,这取决于组织环境和/或细胞因子微环境[26]。血清IL-22含量的降低和潜在致病菌Actinobacteriota、FusobacteriumBibersteiniaFilifactor相对丰度呈显著正相关,而这些菌在RF组的相对丰度下调。Actinobacteriota的相对丰度与结肠炎的易感性密切相关[27]Fusobacterium和人类肠道疾病相关[28]Bibersteinia是一种致病菌,是引起反刍动物肺炎的重要原因,尤其是山羊[29-30]Filifactor是口腔病原体[30]。这一结果反映了IL-22在黏膜免疫中肠道菌群-免疫互作的特殊性。在本试中,血清IL-22含量与Rikenellaceae_RC9_gut_group相对丰度呈显著负相关。Rikenellaceae_RC9_gut_group促进肠道黏膜健康,与宿主饲料利用率和短链脂肪酸代谢呈正相关[31]。这种关联性可能反映IL-22在选择性清除病原体、促进有益菌定植中的双重作用。因此,血清IL-22含量可能作为评估活性微生物移植影响羔羊肠道健康的潜在生物标志物。

3.3 瘤胃微生物移植调控肠道免疫的分子机制

羔羊肠道上皮屏障功能主要依靠微生物屏障、免疫屏障、机械屏障等来共同作用[32]。其中,机械屏障由完整的黏膜上皮细胞和细胞间紧密连接组成,ZOs、Claudins和Occludin是几类最为重要的紧密连接蛋白[33]。本研究中,与CON组相比,RF组和ARF组羔羊结肠组织ZO-1基因相对表达量均显著上调,ARF组Claudin-1的基因相对表达量亦显著上调,这与血清IgA含量升高共同提示移植活性瘤胃液或灭菌瘤胃液均能够增强肠道屏障功能。同时,RF组上调结肠组织IL-10基因相对表达量,这与血清IL-10含量升高的结果相互印证,表明活性微生物可能通过直接刺激免疫细胞产生分泌抗炎因子来稳定肠道健康的内环境。值得注意的是,RF组结肠IL-22及其受体IL22RA1和IL10RB的基因相对表达量同时上调,这与血清IL-22含量降低的结果似乎存在矛盾。研究显示,IL-22在胃肠道中的单一共同功能与维持上皮屏障有关,包括支持上皮内膜的结构完整性及其功能激活[26],这与本研究中紧密连接蛋白基因表达上调的结果一致。结肠上皮IL-22的高表达可能促进上皮修复而不引起全身血液中IL-22含量的升高,而受体表达的上调可能增强了组织对有限IL-22的敏感性。与CON组比,RF组和ARF组TNF/NF-κB信号通路基因(TNFTNFRSF1AFADDTRADDIKBKGIKBKBNFKB1)的相对表达量均显著上调,结合TNF/NF-κB信号上调但未观察到过度炎症的现象,提示可能存在NF-κB活性的负反馈调节。而Western blot结果中,RF组NF-κB蛋白相对表达量显著升高的结果证实了这一点。这种平衡调控可能是活性微生物维持免疫稳态的核心机制之一,体现了共生微生物与宿主长期共进化形成的精密调节机制。

4 结论

瘤胃微生物移植(尤其是活性微生物移植)可通过调节肠道菌群组成、增强屏障功能及平衡促/抗炎因子网络,优化新生羔羊的肠道免疫稳态,为其早期健康发育提供潜在干预策略。灭菌瘤胃液虽保留部分免疫调节功能,但在菌群定植和长期免疫调节效果上不及活性微生物移植,提示活菌的持续代谢作用对维持肠道稳态至关重要。本研究为反刍动物早期微生物干预提供了理论依据,未来可基于特定功能菌群开发针对性微生态制剂,促进幼龄反刍动物的健康养殖。
[1]
TAMILINBAN R, VANAN T T, SIVAKUMAR T, et al. Effect of feeding fresh and frozen rumen fluid on the growth performance of goat kids[J]. Biological Rhythm Research, 2022, 53(4):559-568.

[2]
YU S B, SHI W B, YANG B, et al. Effects of repeated oral inoculation of artificially fed lambs with lyophilized rumen fluid on growth performance,rumen fermentation,microbial population and organ development[J]. Animal Feed Science and Technology, 2020,264:114465.

[3]
BU D P, ZHANG X, MA L, et al. Repeated inoculation of young calves with rumen microbiota does not significantly modulate the rumen prokaryotic microbiota consistently but decreases diarrhea[J]. Frontiers in Microbiology, 2020,11:1403.

[4]
YIN X, JI S, DUAN C, et al. Rumen fluid transplantation affects growth performance of weaned lambs by altering gastrointestinal microbiota,immune function and feed digestibility[J]. Animal, 2021, 15(1):100076.

[5]
HAVERSON K, REHAKOVA Z, SINKORA J, et al. Immune development in jejunal mucosa after colonization with selected commensal gut bacteria:a study in germ-free pigs[J]. Veterinary Immunology and Immunopathology, 2007, 119(3/4):243-253.

[6]
熊菲, 程茜, 刘明方, 等. 双歧杆菌对小鼠肠道树突状细胞数量的影响[J]. 中国微生态学杂志, 2005, 17(6):405-407.

XIONG F, CHENG Q, LIU M F, et al. Effect of Bifidobacterium on the production of dendritic cell in the intestine of mice[J]. Chinese Journal of Microecology, 2005, 17(6):405-407. (in Chinese)

[7]
BUTLER J E, SUN J, WEBER P, et al. Antibody repertoire development in fetal and newborn piglets,Ⅲ.Colonization of the gastrointestinal tract selectively diversifies the preimmune repertoire in mucosal lymphoid tissues[J]. Immunology, 2000, 100(1):119-130.

[8]
吴婷婷. 补喂4种方法处理的瘤胃液制备物对新生羔羊肠道黏膜免疫的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2013.

WU T T. The effect of supplement with four kinds of ruminal fluid preparations on the intestinal mucosal immune of newborn lambs[D]. Master's Thesis. Urumqi: Xinjiang Agricultural University, 2013. (in Chinese)

[9]
FAN D K, FU Y Z, ZHANG J X, et al. Sheep-derived butyrate-producing Clostridium beijerinckii R8 alleviates diarrhea by shaping the gut microbiota of goat kids[J]. Animal Nutrition, 2024,19:13-24.

[10]
COLLINS J W, KEENEY K M, CREPIN V F, et al. Citrobacter rodentium:infection,inflammation and the microbiota[J]. Nature Reviews Microbiology, 2014, 12(9):612-623.

[11]
ATARASHI K, TANOUE T, SHIMA T, et al. Induction of colonic regulatory T cells by indigenous Clostridium species[J]. Science, 2011, 331(6015):337-341.

[12]
FU L, WANG L C, LIU L, et al. Effects of inoculation with active microorganisms derived from adult goats on growth performance,gut microbiota and serum metabolome in newborn lambs[J]. Frontiers in Microbiology, 2023,14:1128271.

[13]
中华人民共和国农业农村部.肉羊营养需要量 NY/T 816—2021[S]. 北京: 中国农业出版社, 2022.

Ministry of Agriculture and Rural Affairs of the PRC.Nutrient requirements of meat-type sheep and goat NY/T 816—2021[S]. Beijing: China Agriculture Press, 2022.

[14]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[15]
MANTOVANI A, CASSATELLA M A, COSTANTINI C, et al. Neutrophils in the activation and regulation of innate and adaptive immunity[J]. Nature Reviews Immunology, 2011, 11(8):519-531.

[16]
WANG J, JI H F, WANG S X, et al. Probiotic Lactobacillus plantarum promotes intestinal barrier function by strengthening the epithelium and modulating gut microbiota[J]. Frontiers in Microbiology, 2018,9:1953.

[17]
SARMIKASOGLOU E, FACIOLA A P. Ruminal bacteria lipopolysaccharides:an immunological and microbial outlook[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):41.

[18]
DALILE B, VAN OUDENHOVE L, VERVLIET B, et al. The role of short-chain fatty acids in microbiota-gut-brain communication[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(8):461-478.

[19]
SARAIVA M, O'GARRA A. The regulation of IL-10 production by immune cells[J]. Nature Reviews Immunology, 2010, 10(3):170-181.

[20]
LIAO W, LIN J X, LEONARD W J. Interleukin-2 at the crossroads of effector responses,tolerance,and immunotherapy[J]. Immunity, 2013, 38(1):13-25.

[21]
焦帅, 付域泽, 崔凯, 等. 短小芽孢杆菌对羔羊肠道炎症和屏障功能的影响[J]. 生物技术通报, 2024, 40(1):344-352.

JIAO S, FU Y Z, CUI K, et al. Effects of Bacillus pumilus on the intestinal inflammation and barrier function of goat kids[J]. Biotechnology Bulletin, 2024, 40(1):344-352. (in Chinese)

[22]
SUN Y B, ZHANG Y X, LIU M Y, et al. Effects of dietary Bacillus amyloliquefaciens CECT 5940 supplementation on growth performance,antioxidant status,immunity,and digestive enzyme activity of broilers fed corn-wheat-soybean meal diets[J]. Poultry Science, 2022, 101(2):101585.

[23]
LINDENBERG F, KRYCH L, FIELDEN J, et al. Expression of immune regulatory genes correlate with the abundance of specific Clostridiales and Verrucomicrobia species in the equine ileum and cecum[J]. Scientific Reports, 2019, 9(1):12674.

[24]
DUBOURG G, LAGIER J C, ARMOUGOM F, et al. High-level colonisation of the human gut by Verrucomicrobia following broad-spectrum antibiotic treatment[J]. International Journal of Antimicrobial Agents, 2013, 41(2):149-155.

[25]
WU F F, GUO X F, ZHANG J C, et al. Phascolarctobacterium faecium abundant colonization in human gastrointestinal tract[J]. Experimental and Therapeutic Medicine, 2017, 14(4):3122-3126.

[26]
DUDAKOV J A, HANASH A M. VAN DEN BRINK M R M.Interleukin-22:immunobiology and pathology[J]. Annual Review of Immunology, 2015,33:747-785.

[27]
IKEDA E, YAMAGUCHI M, KAWABATA S. Gut microbiota-mediated alleviation of dextran sulfate sodium-induced colitis in mice[J]. Gastro Hep Advances, 2024, 3(4):461-470.

[28]
VÁZQUEZ-BAEZA Y, HYDE E R, SUCHODOLSKI J S, et al. Dog and human inflammatory bowel disease rely on overlapping yet distinct dysbiosis networks[J]. Nature Microbiology, 2016,1:16177.

[29]
GUO R, XU M G, YANG K L, et al. Isolation,identification and characteristics of Bibersteinia trehalosi from goat[J]. Microbial Pathogenesis, 2024,191:106678.

[30]
ARUNI A W, MISHRA A, DOU Y T, et al. Filifactor alocis—a new emerging periodontal pathogen[J]. Microbes and Infection, 2015, 17(7):517-530.

[31]
LI F Y, LI C X, CHEN Y H, et al. Host genetics influence the rumen microbiota and heritable rumen microbial features associate with feed efficiency in cattle[J]. Microbiome, 2019, 7(1):92.

[32]
ODENWALD M A, TURNER J R. The intestinal epithelial barrier:a therapeutic target?[J]. Nature Reviews Gastroenterology & Hepatology, 2017, 14(1):9-21.

[33]
SHOUVAL D S, RUFO P A. The role of environmental factors in the pathogenesis of inflammatory bowel diseases: a review[J]. JAMA pediatrics. 2017, 171(10):999-1005.

Outlines

/