RESEARCH PAPER

Lipid Metabolomics-Based Study of Exercise Performance and Cardiac-Related Metabolic Mechanisms in Elite Yili Horses

  • HUANG Yunjiang , 1 ,
  • CHI Yangkaiwen 1 ,
  • HUANG Jinlong 1 ,
  • WANG Tongliang 1 ,
  • REN Wanlu 1, 2 ,
  • MENG Jun 1, 2 ,
  • YAO Xinkui 1, 2 ,
  • WANG Jianwen 1, 2 ,
  • YANG Yuting 1 ,
  • HUANG Gaoqi 1 ,
  • Nuerguli Huanxi 1 ,
  • ZENG Yaqi , 1, 2, *
Expand
  • 1 College of Animal Science, Xinjiang Agricultural University, Urumqi 830052, China
  • 2 Xinjiang Key Laboratory of Horse Breeding and Exercise Physiology, Urumqi 830052, China
*associate professor, E-mail:

Received date: 2025-01-10

  Online published: 2025-11-14

Abstract

The aim of this experiment was to investigate the differences of plasma lipid metabolites before and after a 5 000 m race in elite Yili horses, and the correlation between plasma differential lipid metabolites and cardiac indices as well as exercise performance. Six Yili horses were selected from the top 8 of the 5 000 m speed races at the national level as the test subjects. The echocardiograms were collected from the resting horses before the 5 000 m speed races using the Myeri M6 veterinary portable color Doppler ultrasound system, and cardiac indexes were measured and calculated. The jugular vein blood was collected from the horses in their resting state before the races and immediately after the races, the plasma was then prepared for lipid metabolism testing. The lipid metabolomics test was performed to screen for metabolites that differed between the pre- and post-race periods in Yili horses and to analyze pathway enrichment. The results showed that among the screened 35 plasma differential lipid metabolites, the contents of sphingomyelin (SM) (d40∶4) and phosphatidylinositol (PI) (36∶3) in post-race period were extremely significantly higher than those in pre-race period (P<0.01), The contents of ceramide (Cer) (d32∶0), phosphatidylcholine (PC) (38∶8) and PC (40∶1) were significantly higher than those in pre-race period (P<0.05), the contents of PC (35∶4e) and PC (40∶6) were extremely significantly lower than those in pre-race period (P<0.01), and the contents of phosphatidic acid (PA) (49∶4), PC (38∶0e), phosphatidylethanolamine (PE) (34∶2e), PE (34∶3e), PE (37∶1e), PE (37∶4), PE (49∶3), phosphatidylserine (PS) (27:1e), PS (29∶0), PS (30∶1), triglyceride (TG) (50∶2), TG (54∶3), TG (54∶4), TG (54∶6), TG (56∶7), TG (57∶4), TG (58∶8), TG (61∶4), diacylglycerol (DG) (32∶1e), wax ester (WE) (23∶1), and cardiolipin(CL) (74∶5) were significantly lower than those in pre-race period (P<0.05). Among them, twenty-five plasma differential lipid metabolites were significantly correlated with structural indices of the equine heart (P<0.05), and nine plasma differential lipid metabolites were significantly correlated with functional indices of the equine heart (P<0.05). The plasma differential lipid metabolites were mainly annotated and enriched in metabolic pathways, insulin resistance, glycosylphosphatidylinositol-anchor biosynthesis, autophagy-other, autophagy-animal, and glyceride metabolism. In summary, there are changes in a variety of plasma lipid metabolites in elite Yili horses before and after the 5 000 m race, and it finds many plasma differential lipid metabolites were related to the indices of structure and function in heart of horses.

Cite this article

HUANG Yunjiang , CHI Yangkaiwen , HUANG Jinlong , WANG Tongliang , REN Wanlu , MENG Jun , YAO Xinkui , WANG Jianwen , YANG Yuting , HUANG Gaoqi , Nuerguli Huanxi , ZENG Yaqi . Lipid Metabolomics-Based Study of Exercise Performance and Cardiac-Related Metabolic Mechanisms in Elite Yili Horses[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7767 -7779 . DOI: 10.12418/CJAN2025.631

脂质是生命的基本要素,是机体的能量来源和基本组成,是骨骼肌新陈代谢的重要底物。脂质会受到马匹运动类型和运动强度的影响[1]。运动会增加脂肪分解的速度,并会将脂肪组织中的游离脂肪酸和甘油释放到血液中,而游离脂肪酸则被运动中的肌肉所利用[2]。纯血马在超负荷运动前后血浆非酯化脂肪酸和三酰甘油浓度的变化表明,马匹的脂质代谢在骨骼肌的能量生成过程中扮演着重要的角色[3]。Nolazco等[4]基于液相色谱/质谱(LC/MS)的脂质代谢组学的方法,共检测出933种脂质,其中运动引起13种脂质的信号强度发生显著变化。
心脏是新陈代谢研究的首选器官[5],血液循环系统的动力中枢,为血液流动提供压力,24 h不间断地向机体各个器官、组织提供充足的血流量,以供应氧气和各类营养物质,并带走代谢的终产物,使细胞维持正常的代谢和功能。Plnar等[6]研究在高强度运动中纯血赛马心脏尺寸的变化发现,心脏结构指标与马匹的运动性能有关。彭宣等[7]研究2岁伊犁马心脏结构指标与运动性能的联系中发现,伊犁马舒张末期左心室内径(LVIDd)和左心室长轴径(LVLD)等心脏结构指标与运动性能呈正相关。
在运动马中,对其运动代谢组已有的大量相关研究都表明了马匹运动前后,血液中的代谢物存在诸多差异[8-9]。心脏结构指标与运动性能也存在显著相关,但比较马匹运动前后血浆脂质代谢物变化的研究较少。因此,本试验基于高分辨非靶绝对定量脂质组学,全面分析伊犁马5 000 m竞赛前后血浆脂质代谢物的变化情况,探究血浆脂质代谢物与心脏结构、功能的联系,及其与运动性能的相关性。

1 材料与方法

1.1 试验动物

试验动物选取2023年7月在新疆伊犁哈萨克自治州昭苏天马文化园进行的国家级赛事中获得伊犁马5 000 m赛事前8名中的6匹精英马,其中3匹公马、3匹母马。

1.2 样本采集

在比赛前1天,在马匹静息状态下用迈瑞M6兽用便携式彩色多普勒超声系统采取马匹超声心动图。2.5 MHz 2次在马匹右胸第3~4个或者第4~5个肋骨之间进行二维和M型成像,最大成像深度为30 cm,换能器的焦点被固定在5 cm处,最大扇形角为110°。所有超声心动图检查均由同一操作者进行,只有心率低于40次/min才会记录图像,一共测量3个不连续的心动周期,取平均值。
在比赛前1天静息状态以及赛后即刻,使用乙二胺四乙酸(EDTA)抗凝管采集马匹颈静脉血液样本10 mL,随后以1 355×g离心15 min,取1.5 mL血浆于冻存管中,立刻投入液氮暂存,之后再转入-80 ℃冰箱保存,用于血浆脂质代谢组学检测。

1.3 心脏结构、功能指标处理

从右胸骨旁长轴、右胸骨旁短轴、M模式右胸骨旁短轴图像中,测量和计算获得关于心脏结构的32个指标[10],将其分为20个心脏结构指标:舒张末期左心室游离壁厚度(LVFWd)、收缩末期左心室游离壁厚度(LVFWs)、LVIDd、收缩末期左心室内径(LVIDs)、舒张末期室间隔厚度(IVSd)、收缩末期室间隔厚度(IVSs)、舒张末期右心室内径(RVDd)、收缩末期右心室内径(RVDs)、舒张末期左心室容量(EDV)、收缩末期左心室容量(ESV)、LVLD、二尖瓣内径(MVD)、舒张末期左心房内径(LADd)、收缩末期左心房内径(LADs)、舒张末期主动脉根部内径(AODd)、收缩末期主动脉根部内径(AODs)、舒张末期肺动脉内径(PADd)、收缩末期肺动脉内径(PADs)、舒张末期平均左心室壁厚(MWTd)、舒张末期相对舒张期壁厚(RWTd);12个心脏功能指标:心率(HR)、主动脉根部内径/左心房内径(AOD/LAD)、左心室射血分数(EF)、左心室射血时间(LVET)、每搏量(SV)、每搏量指数(SI)、心输出量(CO)、心排量指数(CI)、左心室短轴缩短分数(FS)、左心室心肌质量(LVM)、心脏指数(VTI)、左心室心肌质量指数(LV MASS-I)。

1.4 血液样本预处理

取适量样本,加入200 μL水和20 μL内部脂质标准混合物(internal lipid standard mixture),以最大转速涡旋混合,加入800 μL甲基叔丁基醚,涡旋混合,加入240 μL预冷甲醇,涡旋混合,低温水浴中超声20 min,室温放置30 min,以14 000×g、10 ℃离心15 min,取上层有机相,氮气吹干,质谱分析时加入200 μL 90%异丙醇/乙腈溶液复溶,充分涡旋,取90 μL复溶液,以14 000×g、10 ℃离心15 min,取上清进行样品分析。

1.5 色谱和质谱分析

1.5.1 色谱条件

样品采用超高效液相色谱系统(Nexera LC-30A,日本)进行分离。C18色谱柱,柱温45 ℃,流速300 μL/min。流动相组成A:乙腈水溶液(乙腈∶水=6∶4,V/V)+0.1%甲酸+0.1 mmol/L甲酸铵,组成B:乙腈异丙醇溶液(乙腈∶异丙醇=1∶9,V/V)+0.1%甲酸+0.1 mmol/L甲酸铵。梯度洗脱程序如下:0~2 min,B维持在30%;2~25 min,B从30%线性变化至100%;25~35 min,B维持在30%。整个分析过程中样品置于10 ℃自动进样器中。为避免仪器检测信号波动而造成的影响,采用随机顺序,进行样本的连续分析。

1.5.2 质谱条件

分别采用电喷雾电离(ESI)正离子和负离子模式进行检测。样品经超高效液相色谱系统分离后采用Q Exactive系列质谱仪(Thermo Scientific,美国)进行质谱分析。ESI源条件如下:加热器温度:300 ℃;鞘气:45 arb;辅助气:15 arb;吹扫气:1 arb;喷雾电压:3.0 kV;毛细管温度:350 ℃;S-Lens射频透镜:50%;一级质谱(MS1)全扫描范围:200~1 800。
脂质分子和脂质碎片的质量电荷比,按照下列方法采集:每次全扫描后采集10个碎片图谱为二级质谱(MS2)。MS1在质荷比(M/Z)200时分辨率为70 000,MS2在M/Z 200时分辨率为17 500。

1.6 数据统计分析

非靶向脂质组绝对定量数据:采用LipidSearch软件对脂质分子及内标脂质分子进行峰识别、峰提取、脂质鉴定(二级鉴定)等处理。主要参数为:母离子质量偏差:5 ppm,子离子质量偏差:5 ppm,子离子强度阈值:5%。用试验质量控制(QC)样本对LipidSearch软件提取得到的数据进行质量评价,得到可靠的数据,进行主成分分析(PCA)和正交偏最小二乘判别分析(OPLS-DA)。本试验OPLS-DA模型以变量投影重要度(VIP)>1.0和P<0.05为差异显著水平。使用KEGG数据库对筛选出的差异脂质代谢物进行富集分析。使用Excel 2021对测量所得的心脏结构、功能指标进行整理,使用SPSS 26.0软件的皮尔逊相关分析心脏结构、功能指标与所筛选差异脂质代谢物间的相关性,P<0.05为显著相关,P<0.01为极显著相关。

2 结果与分析

2.1 伊犁马运动前后脂质数量统计

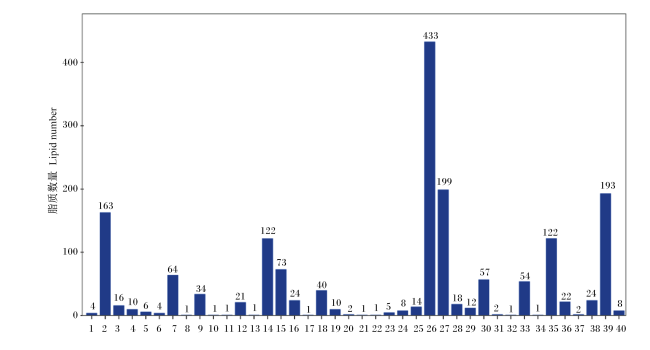
为了更加清楚地了解在伊犁马运动前后脂质代谢物变化规律,使用非靶向脂质组绝对定量方法对样本中的脂质亚类和脂质分子进行鉴定。在试验马的血浆中共检测到40种脂质亚类(如乙酰辅酶A羧化酶、神经酰胺等)和各亚类中包含不同数量脂质分子共1 775种(图1)。
图1 血浆中脂质亚类和脂质分子数量统计

1:乙酰辅酶A羧化酶 acetyl-CoA carboxylase;2:神经酰胺 ceramide;3:二己糖基-N-乙酰己糖基神经酰胺 dihexosyl-N-acetylhexosaminyl ceramide;4:三己糖基-N-乙酰己糖基神经酰胺 trihexosyl-N-acetylhexosaminyl ceramide;5:神经酰胺-1-磷酸 ceramide-1-phosphate;6:胆碱酯酶 cholinesterase;7:心磷脂 cardiolipin;8:辅酶Q coenzyme Q;9:甘油二酯 diacylglycerol;10:二唾液酸神经节苷脂 disialoganglioside;11:单唾液酸神经节苷脂GM2 monosialoganglioside GM2;12:单唾液酸神经节苷脂GM3 monosialoganglioside GM3;13:三唾液酸神经节苷脂 trisialoganglioside;14:单己糖神经酰胺 monohexosyl-ceramide;15:二己糖神经酰胺 dihexosyl-ceramide;16:三己糖神经酰胺 trihexosylceramide;17:溶血磷脂酸 lysophosphatidic acid;18:溶血磷脂酰胆碱 lysophosphatidylcholine;19:溶血磷脂酰乙醇胺 lysophosphatidylethanolamine;20:溶血磷脂酰甘油 lysophosphatidylglycerol;21:溶血磷脂酰肌醇 lysophosphatidylinositol;22:溶血鞘磷脂 lysosphingomyelin;23:甘油单酯 monoacylglycerol;24:O-酰基-1-羟基脂肪酸 O-acyl-1-hydroxy fatty acid;25:磷脂酸 phosphatidic acid 26:磷脂酰胆碱 phosphatidylcholine;27:磷脂酰乙醇胺 phosphatidylethanolamine;28:磷脂酰甘油 phosphatidylglycerol;29:磷酸鞘氨醇 sphingosine-1-phosphate;30:磷脂酰肌醇 phosphatidylinositol;31:磷脂酰肌醇磷酸 phosphatidylinositol phosphate;32:磷脂酰肌醇4,5-二磷酸 phosphatidylinositol 4,5-bisphosphate;33:磷脂酰丝氨酸 phosphatidylserine;34:硅醚 silyl ether;35:鞘磷脂 sphingomyelin;36:鞘氨醇 sphingosine;37:鞘氨醇-1-磷酸 sphingosine-1-phosphate;38:硫苷脂 sulfatide;39:甘油三酯 triglyceride;40:蜡酯 wax ester。

Fig.1 Statistics of lipid subclasses and lipid molecules numbers in plasma

2.2 PCA

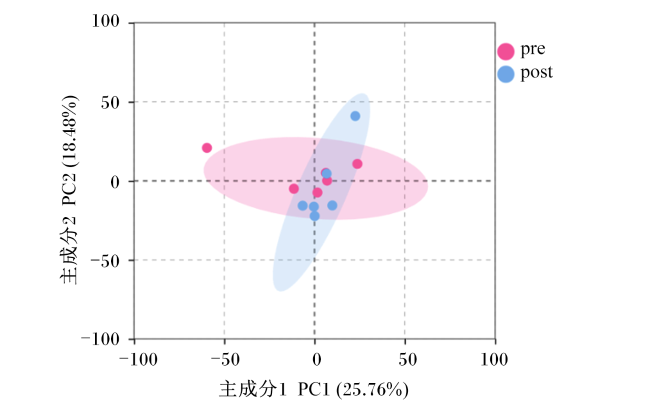
对所有样本进行了PCA,结果如图2所示,主成分1和主成分2分别解释了25.67%和18.48%的变异性。
图2 血浆脂质代谢物PCA图

pre表示比赛前,post表示比赛后。图3图4同。

Fig.2 PCA figure of plasma lipid metabolites

pre indicated before the competition, post indicated after the competition. The same as figures 3 and 4.

2.3 OPLS-DA和聚类分析

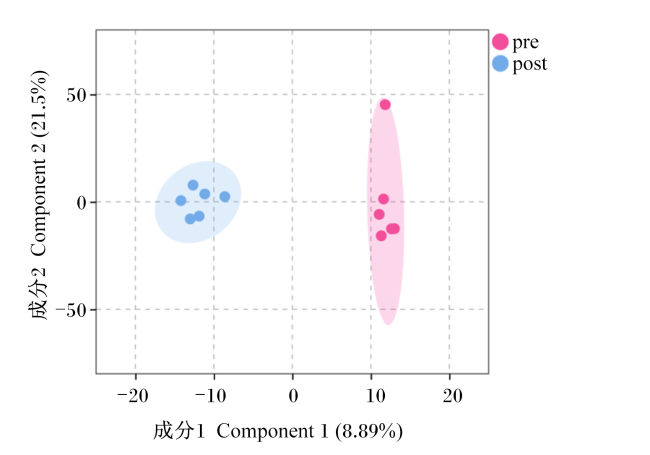
利用OPLS-DA对伊犁马运动前后进行分析绘制得分图,结果显示伊犁马5 000 m竞赛前后血浆中脂质代谢物明显发生分离(图3)。
图3 血浆脂质代谢物OPLS-DA得分图

Fig.3 Plasma lipid metabolites OPLS-DA score chart

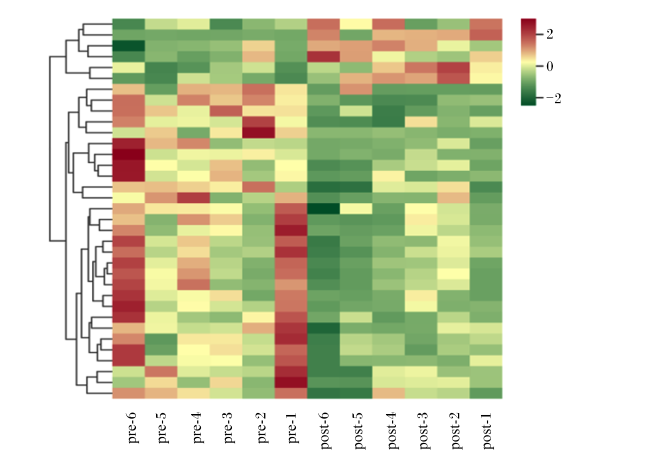
通过聚类热图对伊犁马5 000 m竞赛前后血浆脂质代谢物的累积模式差异进行分析(图4)。结果表明,在不同组别中的物质有明显的差异,不同的生物学重复之间可以很好地聚成一簇,表明生物学重复之间良好同质性和数据的高可靠性。总的来说,OPLS-DA和聚类分析可以说明在伊犁马5 000 m竞赛前后血浆脂质代谢物产生了明显差异。
图4 伊犁马5 000 m竞赛前后血浆脂质代谢物热类聚图

Fig.4 Thermal clustering of plasma lipid metabolites before and after 5 000 m race of Yili horse

2.4 血浆差异脂质代谢物筛选

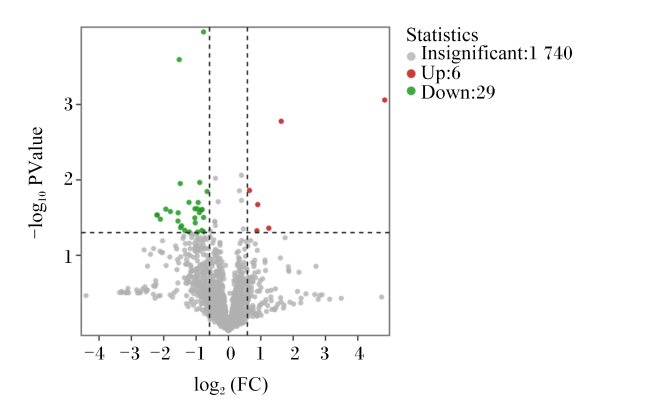
进一步应用差异倍数(FC)值和P值来筛选血浆差异脂质代谢物,满足FC>1.5、P<0.05脂质代谢物用红色表示,满足FC<0.67、P<0.05脂质代谢物用绿色表示,满足1.5>FC>0.67、P>0.05脂质代谢物用灰色表示(图5)。结果(表1)表明,在伊犁马5 000 m竞赛前后的对比中,共有35种差异脂质代谢物,其中6种脂质分子上调,29种脂质分子下调。其中,赛后的鞘磷脂(SM)(d40∶4)、磷脂酰肌醇(PI)(36∶3)含量极显著高于赛前(P<0.01),神经酰胺(Cer)(d32∶0)、磷脂酰胆碱(PC)(38∶8)、PC(40∶1)、SM(d43∶2)含量显著高于赛前(P<0.05),PC(35∶4e)、PC(40∶6)含量极显著低于赛前(P<0.01),磷脂酸(PA)(49∶4)、PC(38∶0e)、磷脂酰乙醇胺(PE)(34∶2e)、PE(34∶3e)、PE(37∶1e)、PE(37∶4)、PE(39∶6)、PE(49∶3)、PE(55∶3)、磷脂酰丝氨酸(PS)(27∶0)、PS(27∶1e)、PS(29∶0)、PS(30∶1)、PS(36∶5e)、甘油三酯(TG)(48∶2)、TG(50∶2)、TG(54∶2)、TG(54∶3)、TG(54∶4)、TG(54∶6)、TG(56∶7)、TG(57∶4)、TG(58∶8)、TG(61∶4)、甘油二酯(DG)(32∶1e)、脂蜡(WE)(23∶1)、心磷脂(CL)(74∶5)含量显著低于赛前(P<0.05)。
图5 血浆差异脂质代谢物火山图

PValue:PP-value;FC:差异倍数 fold change;Statistics:统计;Insignificant;不显著;Up:上调 up-regulated;Down:下调 down-regulated。

Fig.5 Volcanic map of plasma differential lipid metabolites

表1 血浆差异脂质代谢物变化趋势

Table 1 Change trends of plasma differential lipid metabolites

代谢物Metabolites 差异倍数FC PP-value 趋势Trend
SM(d40∶4) 28.444 8 0.000 9 上调
PI(36∶3) 3.096 2 0.001 7 上调
Cer(d32∶0) 2.373 9 0.043 7 上调
PC(38∶8) 1.873 1 0.021 2 上调
SM(d43∶2) 1.840 9 0.047 3 上调
PC(40∶1) 1.569 5 0.013 8 上调
PA(49∶4) 0.340 3 0.027 3 下调
PC(35∶4e) 0.348 4 0.000 3 下调
PC(38∶0e) 0.261 2 0.024 4 下调
PC(40∶6) 0.586 6 0.000 1 下调
PE(34∶2e) 0.366 5 0.040 7 下调
PE(34∶3e) 0.232 6 0.033 2 下调
PE(37∶1e) 0.429 5 0.019 9 下调
PE(37∶4) 0.491 0 0.037 1 下调
PE(39∶6) 0.432 3 0.049 2 下调
PE(49∶3) 0.523 1 0.019 9 下调
PE(55∶3) 0.339 3 0.035 1 下调
PS(27∶0) 0.587 3 0.048 6 下调
PS(27∶1e) 0.569 6 0.024 6 下调
PS(29∶0) 0.587 1 0.031 5 下调
PS(30∶1) 0.288 2 0.026 3 下调
PS(36∶5e) 0.392 6 0.046 7 下调
TG(48∶2) 0.515 6 0.049 2 下调
TG(50∶2) 0.539 8 0.010 8 下调
TG(54∶2) 0.566 3 0.046 8 下调
TG(54∶3) 0.559 1 0.025 1 下调
TG(54∶4) 0.488 0 0.024 2 下调
TG(54∶6) 0.215 8 0.029 2 下调
TG(56∶7) 0.513 2 0.024 1 下调
TG(57∶4) 0.486 8 0.031 9 下调
TG(58∶8) 0.633 4 0.014 2 下调
TG(61∶4) 0.358 6 0.043 0 下调
DG(32∶1e) 0.536 4 0.027 2 下调
WE(23∶1) 0.217 9 0.029 3 下调
CL(74∶5) 0.356 2 0.011 1 下调

SM:鞘磷脂 sphingomyelin;PI:磷脂酰肌醇 phosphatidylinositol;Cer:神经酰胺 ceramide;PC:磷脂酰胆碱 phosphatidylcholine;PA:磷脂酸 phosphatidic acid;PE:磷脂酰乙醇胺 phosphatidylethanolamine;PS:磷脂酰丝氨酸 phosphatidylserine;TG:甘油三酯 triglyceride;DG:甘油二酯 diacylglycerol;WE:脂蜡 wax ester;CL:心磷脂 cardiolipin。图7图9同 the same as Fig.7 to Fig.9

2.5 血浆差异脂质代谢物富集通路分析

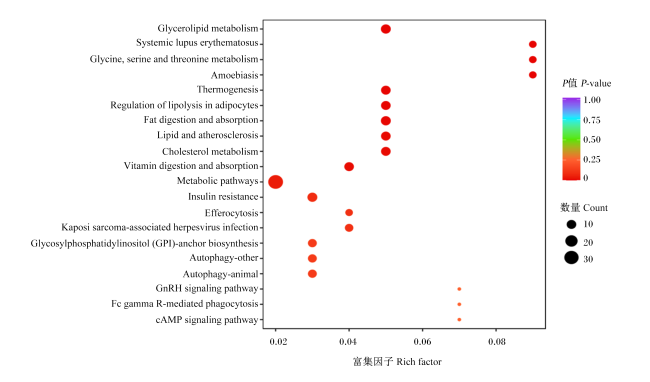
将伊犁马竞赛前后中所有的血浆差异脂质代谢物匹配KEGG数据库,从而获得代谢物参与的通路信息。对注释完的结果进行富集分析,获得血浆差异脂质代谢物富集较多的通路并绘制KEGG富集气泡图。如图6所示,竞赛前后的血浆差异脂质代谢物主要注释和富集在新陈代谢途径、胰岛素抵抗、糖基磷脂酰肌醇(GPI)支链的生物合成、自噬-其他、自噬-动物、甘油酯代谢等途径。
图6 血浆差异脂质代谢物KEGG富集气泡图

Glycerolipid metabolism:甘油酯代谢;Systemic lupus erythematosus:系统性红斑狼疮;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Amoebiasis:阿米巴代谢;Thermogenesis:产热;Regulation of lipolysis in adipocytes:脂肪细胞的脂肪分解调节;Fat digestion and absorption:脂肪的消化和吸收;Lipid and atherosclerosis:脂质与动脉粥样硬化;Cholesterol metabolism;胆固醇代谢;Vitamin digestion and absorption:维生素的消化和吸收;Metabolic pathways:新陈代谢途径;Insulin resistance:胰岛素抵抗;Efferocytosis:胞葬作用;Kaposi sarcoma-associated herpesvirus infection:肉瘤相关疱疹病毒感染;Glycosylphosphatidylinositol (GPI)-anchor biosynthesis:糖基磷脂酰肌醇(GPI)支链的生物合成;Autophagy-other:自噬-其他;Autophagy-animal:自噬-动物;GnRH signaling pathway:促性腺激素释放激素信号通路;Fc gamma R-mediated phagocytosis:FcγR介导的吞噬作用;cAMP signaling pathway:环磷酸腺苷信号通路。

Fig.6 Bubble map of KEGG enrichment of plasma differential lipid metabolites

2.6 差异脂质代谢物与心脏结构指标相关性分析

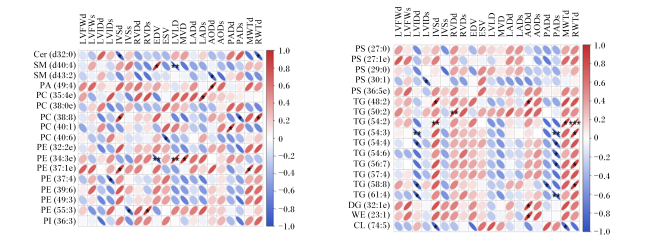
图7所示,Cer(d32∶0)与IVSd、RWTd呈显著负相关(P<0.05);SM(d40∶4)与EDV呈显著正相关(P<0.05),与LVLD呈极显著负相关(P<0.01);PC(38∶8)与IVSd、RWTd呈显著正相关(P<0.05),与PADs呈显著负相关(P<0.05);PC(40∶6)与ESV呈显著负相关(P<0.05);PE(34∶3e)与EDV呈极显著负相关(P<0.01),与LVLD呈极显著正相关(P<0.01),与MVD呈显著正相关(P<0.05);PE(37∶1e)与IVSd、MWTd呈显著正相关(P<0.05);PE(37∶4)与LVIDs呈显著负相关(P<0.05);PS(30∶1)与LVIDs呈显著负相关(P<0.05);TG(48∶2)与IVSd、AODd呈显著正相关(P<0.05);TG(54∶2)与IVS、RWTd呈极显著正相关(P<0.01),与MWTd呈显著正相关(P<0.05);TG(54∶3)与LVIDd、PADS呈极显著负相关(P<0.01),与RWTd呈显著正相关(P<0.05);TG(54∶4)与LVIDd、PADs呈显著负相关(P<0.05);TG(56∶7)与PADs呈显著负相关(P<0.05),与RWTd呈显著正相关(P<0.05);TG(58∶8)与LVIDd、PADs呈显著负相关(P<0.05),与RWTd呈显著正相关(P<0.05);TG(61∶4)与LVIDd呈显著负相关(P<0.05),与PADs呈极显著负相关(P<0.05);CL(74∶5)与IVSd、MWTd呈显著负相关(P<0.05)。
图7 差异脂质代谢物与心脏结构参数相关性

红色表示呈正相关,蓝色表示呈负相关。P值越接近0颜色越浅,P值越接近0.01颜色越深。*表示显著相关(P<0.05),**和***表示极显著相关(P<0.01)。图8图9同。The red color indicated positively correlation, and the blue color indicated negatively correlation. The closer the P-value to 0 the lighter the color, and the closer the P-value to 0.01 the darker the color. * indicated significant correlation (P<0.05), ** and *** indicated extremely significant correlation (P<0.01). The same Figures 8 and 9.

LVFWd:舒张末期左心室游离壁厚度 end-diastolic left ventricular free wall thickness;LVFWs:收缩末期左心室游离壁厚度 end-systolic left ventricular free wall thickness;LVIDd:舒张末期左心室内径 end-diastolic left ventricular free wall thickness;LVIDs:收缩末期左心室内径 end-systolic left ventricular diameter;IVSd:舒张末期室间隔厚度 end-diastolic interventricular septal thickness;IVSs:收缩末期室间隔厚度 end-systolic interventricular septal thickness;RVDd:舒张末期右心室内径 end-diastolic right ventricular diameter;RVDs:收缩末期右心室内径 end-systolic right ventricular diameter;EDV:舒张末期左心室容量 end-diastolic left ventricular volume;ESV:收缩末期左心室容量 end-systolic left ventricular volume;LVLD:左心室长轴径 left ventricle long axis diameter;MVD:二尖瓣内径 mitral valve diameter;LADd:舒张末期左心房内径 End-diastolic left atrial diameter;LADs:收缩末期左心房内径 end-systolic left atrial diameter;AODd:舒张末期主动脉根部内径 end-diastolic aortic root diameter;AODs:收缩末期主动脉根部内径 end-systolic aortic root diameter;PADd:舒张末期肺动脉内径 end-diastolic pulmonary artery diameter;PADs:收缩末期肺动脉内径 end-systolic pulmonary artery diameter;MWTd:舒张末期平均左心室壁厚 end-diastolic mean left ventricular wall thickness;RWTd:舒张末期相对舒张期壁厚 end-diastolic relative left ventricular wall thickness。

Fig.7 Correlation between differential lipid metabolites and cardiac structural parameters

2.7 差异脂质代谢物与心脏功能指标相关性分析

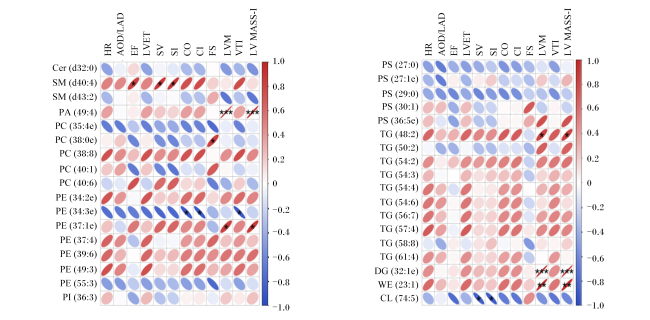
图8所示,SM(d40∶4)与EF、SV、SI呈显著正相关(P<0.05);PA(49∶4)与LVM、LVMASS-I呈极显著正相关(P<0.01);PC(38∶0e)与FS呈极显著正相关(P<0.01);PE(34∶3e)与CO、CI、VTI呈显著负相关(P<0.05);PE(37∶1e)与LVM、LVMASS-I呈显著正相关(P<0.05);TG(48∶2)与LVM、LVMASS-I呈显著正相关(P<0.05);DG(32∶1e)与LVM、LVMASS-I呈极显著正相关(P<0.01);WE(23∶1)与LVM、LVMASS-I呈极显著正相关(P<0.01);CL(74∶5)与SV、SI呈显著负相关(P<0.05)。
图8 差异脂质代谢物与心脏功能参数相关性

HR:心率 heart rate;AOD/LAD:主动脉根部内径/左心房内径 aortic root diameter/left atrial diameter;EF:左心室射血分数 ejection fraction;LVET:左心室射血时间 left ventricular ejection time;SV:每搏量 stroke volume;SI:每搏量指数 stroke volume index;CO:心输出量 cardiac output;CI:心排量指数 cardiac output index;FS:左心室短轴缩短分数 fractional shortening;LVM:左心室心肌质量 left ventricular myocardial mass;VTI:心脏指数 velocity time integral;LV MASS-I:左心室心肌质量指数 left ventricular myocardial mass index。

Fig.8 Correlation between differential lipid metabolites and cardiac function parameters

2.8 差异脂质代谢物与运动性能相关性分析

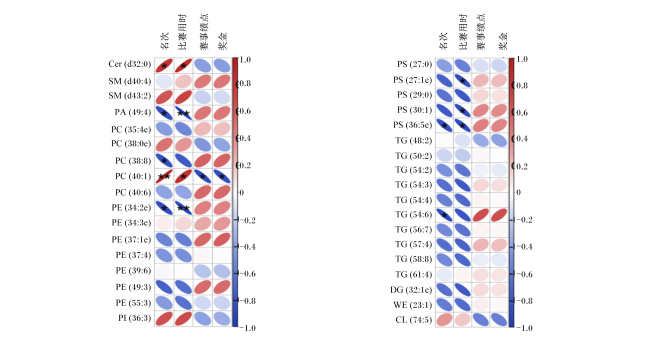
图9所示,Cer(d32∶0)与名次、比赛用时呈显著正相关(P<0.05);PA(49∶4)与名次呈显著负相关(P<0.05),与比赛用时呈极显著负相关(P<0.01);PC(38∶8)与名次呈显著负相关(P<0.05);PC(40∶1)与名次呈极显著正相关(P<0.01),与比赛用时呈显著正相关(P<0.05),与赛事绩点、奖金呈显著负相关(P<0.05);PE(34∶2e)与名次呈显著负相关(P<0.05),与比赛用时呈极显著负相关(P<0.01);PS(27∶1e)、PS(30∶1)与比赛用时呈显著负相关(P<0.05);PS(36∶5e)与名次、比赛用时呈显著负相关(P<0.05);TG(54∶6)与名次呈显著负相关(P<0.05)。
图9 差异脂质代谢物与运动性能的相关性

名次:rank;比赛用时:race time;赛事绩点:event points;奖金:prize money。

Fig.9 Correlation between differential lipid metabolites and athletic performance

3 讨论

运动训练是提高代谢灵活性的最佳策略之一,代谢灵活性是指代谢组织(如肌肉、肝脏和心脏)能够根据营养物质的可用性和能量需求的变化,在不同的能量底物之间进行切换,以高效产生三磷酸腺苷(ATP)的能力,而不同代谢物含量的变化可以反映机体的运动状态[11]
对于从事不同运动类型马匹的心脏结构、功能会出现适应性变化[12],相关研究表明,马匹运动优势存在于具有不同种族类型的特定心脏表型[13-14]。Sleeper等[15]对优秀和非优秀阿拉伯耐力赛马超声心动图比较发现,优秀组马的LVIDd、LVIDs、LVM和LVSV明显高于非优秀组马,这些研究都表明运动性能与心脏的结构、功能具有相关性;在伊犁马中试验中,LVIDd、LVIDs、LVLD、IVSd、EDV、ESV、MWTd、RWTd、SV、SI这10个关键心脏指标与至少2个运动性能指标显著相关,且在伊犁马中这些心脏指标越大运动性能越好[7]

3.1 Cer对运动性能的影响

Cer(d32∶0)作为一种特定的蜡状脂质,在细胞膜中发挥着重要的结构和功能作用,并且Cer(d32∶0)在调节能量代谢和细胞应激反应方面扮演着关键角色[16]。Tanaka等[17]研究表明,运动可以通过影响细胞内的Cer含量,进而调节脂质代谢和能量平衡,从而影响整体运动表现。Cer还与肌肉细胞的能量代谢密切相关,在运动过程中,Cer含量的变化可能与肌肉的能量需求和代谢状态直接相关[18]。另外,Cer含量的升高会导致肌肉细胞的凋亡增加,从而影响肌肉质量和功能,Cer(d32∶0)还富集于胰岛素抵抗这一代谢途径,Cer积累会抑制胰岛素敏感性,通过抑制蛋白激酶B(PKB)激活阻断葡萄糖转运蛋白4的易位,降低肌肉细胞对葡萄糖摄取[19-20],从而影响运动表现。在本试验中,Cer(d32∶0)与对马匹运动性能的心脏指标IVSd、RWTd呈显著负相关,以及Cer(d32∶0)与名次、比赛用时呈显著正相关,且Cer(d32∶0)含量在伊犁马竞赛后血浆中显著上调,表明Cer(d32∶0)含量上升会对运动性能产生负面影响。

3.2 SM对运动性能的影响

SM不仅广泛存在于神经细胞膜中,还参与信号传导和细胞代谢调控,研究表明,SM通过调节细胞膜的流动性和稳定性,影响膜蛋白的功能和相互作用,从而在神经信号传递和细胞间通讯中发挥关键作用[21-22],并且SM(d40∶4)主要富集于SM信号通路,此外,SM代谢途径在心肌增殖和心脏再生修复中具有关键作用[23]。在本试验中,SM(d40∶4)含量在伊犁马赛后血浆中显著上调,可能与马匹的兴奋性强度相关以及为心脏高强度泵血提供重要保障。另外,SM(d40∶4)与EDV、SV、SI呈显著正相关,并且EDV、SV、SI与伊犁马运动性能呈显著正相关,SM(d40∶4)含量的上调可能通过增强心脏功能和优化能量代谢,为马匹提供更强的心脏泵血能力,从而提升运动表现。

3.3 PC对运动性能的影响

PC是真核细胞膜中最丰富的磷脂,是大多数哺乳动物膜中的主要磷脂[24]。研究表明,PC不仅在维持线粒体膜的完整性方面发挥关键作用,还参与调节线粒体的生物能量学功能,PC能够促进线粒体膜的流动性和稳定性,从而支持电子传递链的有效运作[25]。因此,PC(38∶8)含量在伊犁马竞赛后血浆中显著上调,是为在马匹剧烈运动过程中加快线粒体生成ATP速度,以适应机体所需能量。PC(38∶8)与IVSd、RWTd呈显著正相关,PC(38∶8)与名次呈显著负相关,表明伊犁马赛后血浆中PC(38∶8)的含量越高运动性能越好。

3.4 TG对运动性能的影响

TG(54∶2)主要富集于甘油酯代谢途径,TG的代谢物主要包括游离脂肪酸和甘油,游离脂肪酸不仅是能量的重要来源,还参与细胞膜的构建和信号传导等生理过程[26],此外,甘油作为糖异生的前体,可以在肝脏中转化为葡萄糖,从而在能量供应不足时为机体提供额外的能量,并且在马匹运动过程中能够提高TG水解酶脂蛋白脂肪酶(LPL)的活性,加速TG水解为肌肉的能量[27]。因此,TG(54∶2)含量在赛后显著降低与其氧化分解为机体供能有关,TG(54∶2)含量的下降代表为机体供能原料减少,导致TG(54∶2)含量下调,对马匹运动性能产生负面影响。TG(54∶2)与IVSd、MWTd、RWTd呈显著正相关,并且IVSd、MWTd、RWTd与运动性能呈显著正相关,表明伊犁马血浆中TG(54∶2)含量下降会对马匹运动性能产生负面影响。

3.5 CL对运动性能的影响

CL是一种特殊的磷脂,是唯一在线粒体中合成的脂质[28],CL合成和重塑与线粒体的能量代谢密切相关,影响线粒体的形态和功能[29],运动会导致细胞对能量的需求增加,从而影响CL的合成和转化,进而影响线粒体功能和细胞整体代谢状态。研究表明,运动训练能够刺激线粒体的生物合成,促进CL的合成和重塑,从而改善线粒体的功能和能量代谢[30-31],CL的不饱和度有助于维持电子传递链(ETC)的结构和功能,确保电子传递的高效进行,从而提高ATP合成效率,CL(74∶5)含量在伊犁马赛后血浆中显著下调可能与线粒体合成ATP为机体功能的结果有关。CL(74∶5)与IVSd、MWTd、SV、SI呈显著负相关,并且IVSd、MWTd、SV、SI与运动性能呈显著正相关,表明伊犁马血浆中CL(74∶5)含量下降会对马匹运动性能产生积极作用。
综上所述,这5种差异脂质代谢物对运动性能的影响结果与心脏指标对运动性能的影响结果一致,虽然SM(d40∶4)、TG(54∶2)、CL(74∶5)与马匹运动性能指标没有明显显著相关,可能是试验马匹都为精英伊犁马,导致运动性能指标变化不明显的结果。另外,PC(40∶1)与10个关键心脏指标没有显著的相关关系,但PC(40∶1)与4个判定马匹运动性能的指标(名次、比赛用时、赛事绩点、奖金)都存在显著相关,表明PC(40∶1)可作为评估精英伊犁马的运动性能的指标。

4 结论

综上所述,精英伊犁马5 000 m竞赛前后血浆脂质差异代谢物中SM(d40∶4)、PA(49∶4)等与马匹的心脏结构、功能存在显著相关关系,以及PC(40∶1)、Cer(d32∶0)等与马匹的名次、比赛用时、赛事绩点、奖金中最少2个存在显著相关关系。本试验将马匹心脏结构、功能与脂质代谢相结合评估伊犁马运动性能,为运动马更有效的训练与营养补充提供参考。
[1]
JANG H J, KIM D M, KIM K B, et al. Analysis of metabolomic patterns in thoroughbreds before and after exercise[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(11):1633-1642.

[2]
SIQUEIRA R F, SILVA B O, FERNANDES M L, et al. Evaluation of the racial difference in body condition score and parameters of lipid metabolism in purebred Arabian horses and thoroughbred horses trained for racing[J]. Brazilian Journal of Veterinary Research and Animal Science, 2019, 56(4):e158360.

[3]
PICCIONE G, ARFUSO F, FAZIO F, et al. Serum lipid modification related to exercise and polyunsaturated fatty acid supplementation in jumpers and thoroughbred horses[J]. Journal of Equine Veterinary Science, 2014, 34(10):1181-1187.

[4]
NOLAZCO S L, VILLARINO N F, DASGUPTA N, et al. The lipidome of thoroughbred racehorses before and after supramaximal exercise[J]. Equine Veterinary Journal, 2019, 51(5):696-700.

[5]
TAEGTMEYER H, LAM T, DAVOGUSTTO G. Cardiac metabolism in perspective[J]. Comprehensive Physiology, 2016, 6(4):1675-1699.

[6]
PINAR O, SANCAK A A. Effects of different heart dimensions on race performance in thoroughbred race horses[J]. Acta Scientiae Veterinariae, 2018, 46(1):7.

[7]
彭宣, 王彤亮, 孟军, 等. 2岁伊犁马心脏维度与运动性能的关联性分析[J]. 畜牧兽医学报, 2024, 55(7):2963-2972.

PENG X, WANG T L, MENG J, et al. Correlation analysis of cardiac dimensions and racing performance in 2 years old Yili horses[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(7):2963-2972. (in Chinese)

[8]
孙远方, 马勇, 王建文, 等. 速度型伊犁马短途比赛前后血浆代谢组学研究[J]. 动物营养学报, 2024, 36(4):2561-2571.

SUN Y F, MA Y, WANG J W, et al. Study on plasma metabolomics before and after short distance race of speed Yili horses[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2561-2571. (in Chinese)

[9]
王建文, 姚新奎, 曾亚琦, 等. 不同比赛途程伊犁马赛后血浆代谢组分析[J]. 动物营养学报, 2023, 35(6):3832-3842.

WANG J W, YAO X K, ZENG Y Q, et al. Plasma metabolomics analysis of Yili horses at different race distances after racing[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3832-3842. (in Chinese)

[10]
彭宣, 王彤亮, 鲍奕柯, 等. 伊犁马体尺与心脏结构和功能参数的关联性分析[J]. 畜牧兽医学报, 2023, 54(11):4615-4624.

PENG X, WANG T L, BAO Y K, et al. Correlation analysis between body size and cardiac structural and functional parameters in Yili horses[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(11):4615-4624. (in Chinese)

[11]
ZACHAREWICZ E, HESSELINK M K C, SCHRAUWEN P. Exercise counteracts lipotoxicity by improving lipid turnover and lipid droplet quality[J]. Journal of Internal Medicine, 2018, 284(5):505-518.

[12]
ZUCCA E, FERRUCCI F, CROCI C, et al. Echocardiographic measurements of cardiac dimensions in normal standardbred racehorses[J]. Journal of Veterinary Cardiology, 2008, 10(1):45-51.

[13]
FLETHØJ M, SCHWARZWALD C C, HAUGAARD M M, et al. Left ventricular function after prolonged exercise in equine endurance athletes[J]. Journal of Veterinary Internal Medicine, 2016, 30(4):1260-1269.

[14]
CHANDA M, PETCHDEE S. Cardiac morphology changes in horses as a response to various types of sports[J]. Journal of Applied Animal Research, 2022, 50(1):453-459.

[15]
SLEEPER M M, DURANDO M M, HOLBROOK T C, et al. Comparison of echocardiographic measurements in elite and nonelite Arabian endurance horses[J]. American Journal of Veterinary Research, 2014, 75(10):893-898.

[16]
SIETSEMA K E, ROSSITER H B. Exercise physiology and cardiopulmonary exercise testing[J]. Seminars in Respiratory and Critical Care Medicine, 2023, 44(5):661-680.

[17]
TANAKA T, NISHIMURA A, NISHIYAMA K, et al. Mitochondrial dynamics in exercise physiology[J]. Pflugers Archiv:European Journal of Physiology, 2020, 472(2):137-153.

[18]
AMORESE A J, RYAN A S. Home-based tele-exercise in musculoskeletal conditions and chronic disease:a literature review[J]. Frontiers in Rehabilitation Sciences, 2022,3:811465.

[19]
XIA Q S, LU F E, WU F, et al. New role for ceramide in hypoxia and insulin resistance[J]. World Journal of Gastroenterology, 2020, 26(18):2177-2186.

[20]
ZEMSKI BERRY K A, GARFIELD A, JAMBAL P, et al. Oxidised phosphatidylcholine induces sarcolemmal ceramide accumulation and insulin resistance in skeletal muscle[J]. Diabetologia, 2024, 67(12):2819-2832.

[21]
FENG L T, CHEN Z N, BIAN H J. Skeletal muscle:molecular structure,myogenesis,biological functions,and diseases[J]. MedComm, 2024, 5(7):e649.

[22]
SHIN D Y, TAKAGI H, HIROSHIMA M, et al. Sphingomyelin metabolism underlies Ras excitability for efficient cell migration and chemotaxis[J]. Cell Structure and Function, 2023, 48(2):145-160.

[23]
JI X Q, CHEN Z H, WANG Q Y, et al. Sphingolipid metabolism controls mammalian heart regeneration[J]. Cell Metabolism, 2024, 36(4):839-856.e8.

[24]
DE FREITAS SAITO R, et al.DE SOUSA ANDRADE L N,BUSTOS S O, Phosphatidylcholine-derived lipid mediators:the crosstalk between cancer cells and immune cells[J]. Frontiers in Immunology, 2022,13:768606.

[25]
SCHUGAR R C, GLINIAK C M, OSBORN L J, et al. Gut microbe-targeted choline trimethylamine lyase inhibition improves obesity via rewiring of host circadian rhythms[J]. eLife, 2022,11:e63998.

[26]
MUSCELLA A, STEFÀNO E, LUNETTI P, et al. The regulation of fat metabolism during aerobic exercise[J]. Biomolecules, 2020, 10(12):1699.

[27]
KERSTEN S. Role and mechanism of the action of angiopoietin-like protein ANGPTL4 in plasma lipid metabolism[J]. Journal of Lipid Research, 2021,62:100150.

[28]
MONTERO-BULLON J F, MELO T, FERREIRA R, et al. Exercise training counteracts urothelial carcinoma-induced alterations in skeletal muscle mitochondria phospholipidome in an animal model[J]. Scientific Reports, 2019, 9(1):13423.

[29]
DUDEK J, HARTMANN M, REHLING P. The role of mitochondrial cardiolipin in heart function and its implication in cardiac disease[J]. Biochimica et Biophysica Acta:Molecular Basis of Disease, 2019, 1865(4):810-821.

[30]
MEMME J M, HOOD D A. Molecular basis for the therapeutic effects of exercise on mitochondrial defects[J]. Frontiers in Physiology, 2020,11:615038.

[31]
LUÉVANO-MARTÍNEZ L A, PINTO I F D, YOSHINAGA M Y, et al. In yeast,cardiolipin unsaturation level plays a key role in mitochondrial function and inner membrane integrity[J]. Biochimica et Biophysica Acta:Bioenergetics, 2022, 1863(7):148587.

Outlines

/