RESEARCH PAPER

Effects of Gut Microbiota Metabolite Trimethylamine Oxide on Lipid Metabolism and Peroxisome Proliferators-Activated Receptor α Signaling Pathway in Dairy Cows' Hepatocytes

  • MAO Yongxia ,
  • WANG Feifei ,
  • GUO Yansheng , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*professor, E-mail:

Received date: 2025-04-11

  Online published: 2025-11-14

Abstract

This experiment aimed to investigate the effects of gut microbiota metabolite trimethylamine oxide (TMAO) on lipid metabolism and peroxisome proliferators-activated receptor α (PPARα) signaling pathway in dairy cows' hepatocytes. The experiment was divided into control group (CON group) and TMAO intervention group (FLD group), the optimal induction time was determined by measuring cell viability at different induction times using the CCK-8 assay. The oil red O staining and lipid quantification were performed to evaluate lipid droplet deposition in dairy cows' hepatocytes, and the contents of triglycerides (TG), total cholesterol (TCHO), low density lipoprotein-cholesterol (HDL-C), high density lipoprotein-cholesterol (LDL-C), as well as microsomal triglyceride transfer protein (MTTP) and apolipoprotein-B100 (Apo-B100) in hepatocytes and culture medium were measured. The real-time quantitative PCR was used to detect the expression of key genes in the PPARα signaling pathway, and the Western Blot was used to detect the expression of key proteins in the PPARα pathway. The results showed as follows: 1) the cell viability induced by 400 μmol/L TMAO at 0, 3, 6, 9, 12, 15 and 24 h showed a gradually decreasing trend, and the cell viability was significantly decreased to 71.05% at 15 h (P<0.05). 2) Compared with the CON group, the contents of TG and TCHO in hepatocytes of FLD group were significantly increased (P<0.05), the LDL-C content was significantly decreased (P<0.05), and the MTTP and Apo-B100 contents were extremely significantly decreased (P<0.01); the contents of TG, TCHO, LDL-C, HDL-C and Apo-B100 in culture medium of FLD group were extremely significantly decreased (P<0.01), and the MTTP content was significantly decreased (P<0.05). 3) Compared with the CON group, the mRNA relative expression levels of fatty acid desaturase 2 (FADS2), 3-hydroxy-3-methylglutaryl coenzyme A synthetase 1 (HMGCS1), long-chain acyl coenzyme A synthetases 1 (ACSL1) and PPARα in hepatocytes of FLD group were extremely significantly increased (P<0.01), and the mRNA relative expression levels of cytochrome P450 family 27 subfamily member 1 (CYP27A1) and solute carrier family 27 member 1 (SLC27A1) were significantly increased (P<0.05), and the protein relative expression levels of FADS2 and HMGCS1 were significantly increased (P<0.05). In conclusion, the gut microbiota metabolite TMAO can cause lipid metabolism disorders in dairy cows' hepatocytes, and affect the expression of key genes and proteins in the PPARα signaling pathway.

Cite this article

MAO Yongxia , WANG Feifei , GUO Yansheng . Effects of Gut Microbiota Metabolite Trimethylamine Oxide on Lipid Metabolism and Peroxisome Proliferators-Activated Receptor α Signaling Pathway in Dairy Cows' Hepatocytes[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7872 -7884 . DOI: 10.12418/CJAN2025.640

正常生理状态下,反刍动物肝脏通过调控脂肪酸的摄取、合成、利用和运输等过程,维持脂质代谢的动态平衡[1]。然而,围产期奶牛由于干物质采食量下降和泌乳启动等因素,导致能量供需失衡,陷入能量负平衡(negative energy balance,NEB)状态。在NEB状态下,机体会动员脂肪组织释放大量的非酯化脂肪酸(nonesterified fatty acid,NEFA),NEFA经门静脉流入肝脏并在肝脏内进行氧化供能,当肝脏对NEFA的代谢速率低于输入速率,就会致使甘油三酯(triglyceride,TG)异常堆积,最终引发脂肪肝[2]。调查显示,在产犊后第1个月,5%~10%的奶牛患有重度脂肪肝,30%~40%的奶牛患有中度脂肪肝[3]。这一问题已成为制约奶牛养殖业健康发展的重要瓶颈。过氧化物酶体增殖物激活受体(peroxisome proliferators-activated receptor,PPAR)家族作为脂质代谢的重要调控因子,在脂肪肝病理进程中发挥关键作用。其中,PPARα通过调控脂蛋白脂肪酶(lipoprotein lipase,LPL)等脂肪酸转运基因与长链脂酰辅酶A合成酶(long chain acyl-CoA synthetase,ACSL)等脂肪酸氧化基因的表达,调节肝脏和骨骼肌中的脂质代谢和葡萄糖稳态;而PPARγ则主要介导脂肪组织的脂质摄取和脂肪生成过程。已有研究表明,PPARα可能是非酒精性脂肪性肝病(nonalcoholic fatty liver disease,NAFLD)治疗的潜在靶点[4-5]。Zou等[6]研究进一步证明,铁皮石斛可以通过PPAR-维甲酸X受体(retinoid X receptor,RXR)信号通路抑制肝脏TG蓄积并促进脂肪酸氧化,从而缓解肝脏脂肪变性。
肠道与肝脏通过门静脉、胆管和体循环形成紧密的肠-肝轴双向串扰,其中肠道屏障通过阻止有害代谢产物、细菌及其抗原的转移,对肝脏起到保护作用。因此,肠道屏障受损被认为是肠-肝轴功能失调的关键诱因,也是脂肪肝发病的重要特征[7]。最新研究揭示,肠道菌群代谢产物氧化三甲胺(trimethylamine oxide,TMAO)会加剧高脂饮食导致的肠道屏障结构和功能损伤,抑制WNT/β-连环蛋白(WNT/β-catenin)信号通路,负向调节肠-肝轴的双向串扰,对肝脏产生不利影响[8]。TMAO是一种膳食营养素,由肠道微生物代谢甜菜碱、左旋肉碱及胆碱等物质转化为三甲胺(trimethylamine,TMA),后者经门静脉转运至肝脏并在黄素单加氧酶(flavin containing monooxygenase,FMOs)催化下氧化为TMAO。临床研究显示,NAFLD、肥胖及糖尿病患者的血浆TMAO浓度较健康人群显著升高[9-11]。前瞻性研究进一步证实,血浆TMAO浓度与NAFLD患者的全因死亡率有关[12]。这些研究结果凸显了TMAO作为脂肪肝风险标志物的潜在价值。最新研究显示,TMAO在脂质代谢稳态中发挥着重要的调控作用[13]。TMAO干预可显著促进HepG2细胞的脂质沉积,并加重NAFLD大鼠的肝脏损伤和代谢紊乱[8]。另有研究揭示TMAO可通过激活蛋白激酶R样内质网激酶(protein kinase R-like endoplasmic reticulum kinase,PERK)信号通路,促进HepG2细胞脂质生成,进而引发肝脏损伤[14]。虽然PPARα信号通路作为脂质代谢调控的核心枢纽已被广泛认知,但TMAO对反刍动物中该信号通路的影响尚未见报道。
基于此,本研究利用TMAO干预奶牛肝细胞,探究TMAO对奶牛肝细胞脂质代谢和PPARα信号通路的影响,为揭示肠道菌群代谢产物TMAO与PPARα信号通路的关联提供新的证据,并为奶牛脂肪肝的防治提供新的思路与理论依据。

1 材料与方法

1.1 试验材料

主要仪器:二氧化碳培养箱(QP-160)、超低温冰箱(BDF-86V348T)均来自博科控股集团有限公司,荧光倒置显微镜成像系统(CXK-53)来自日本奥林巴斯公司,高速台式离心机(H-1650)来自湖南湘仪实验室仪器开发有限公司,酶标仪(F-3)来自美国赛默飞世尔科技有限公司,超声波破碎仪(JY92-IIN)来自上海沪析实业有限公司,PCR仪(T-100)、Western转印/电泳系统(MINI PROTEANT Tetra)均来自美国伯乐生命医学产品公司,荧光定量PCR仪(Lepgen-96)来自乐普(北京)医疗器械股份有限公司,全自动化学发光成像系统(Tanon-5200)来自上海天能科技有限公司。
主要材料:奶牛原代肝细胞由课题组所分离[15],TMAO(C3H9NO·2H2O)购自上海麦克林生化科技有限公司,DMEM高糖培养基、澳洲胎牛血清(FBS)、青霉素(10 kU/mL)和链霉素(10 mg/mL)均购自美国赛默飞世尔科技有限公司,胰蛋白酶-乙二胺四乙酸(EDTA)消化液、油红O染色试剂盒和BCA蛋白浓度测定试剂盒购自北京索莱宝科技有限公司,CCK-8增强型溶液购自大连博格林生物科技有限公司,预染蛋白Marker购自武汉赛维尔生物科技有限公司,全蛋白提取试剂盒购自江苏凯基生物技术股份有限公司,超敏化学发光检测试剂盒购自苏州优逸兰迪生物科技有限公司,β-肌动蛋白(β-actin)、脂肪酸去饱和酶2(fatty acid desaturase 2,FADS2)、长链脂酰辅酶A合成酶1(long-chain acyl coenzyme A synthetases 1,ACSL1)、3-羟基-3-甲基戊二酰辅酶A合酶1(3-hydroxy-3-methylglutaryl coenzyme A synthetase 1,HMGCS1)和辣根过氧化物酶标记的山羊抗兔免疫球蛋白G(HRP-conjugated goat anti-rabbit IgG)抗体均购自武汉爱博泰克生物科技有限公司。

1.2 试验设计

课题组前期采用不同浓度TMAO(100~400 μmol/L)和250 μmol/L油酸钠(阳性对照组)干预奶牛肝细胞,发现400 μmol/L TMAO为最佳诱导浓度[15]。本试验分为对照组(CON组)和TMAO干预组(FLD组),在稳定传代的肝细胞中加入等量DMEM基础培养基(不含血清和双抗)饥饿处理12 h后,CON组更换为含10%胎牛血清和1%青霉素+链霉素的DMEM基础培养基,FLD组更换为含400 μmol/L TMAO的DMEM基础培养基,置于37 ℃、5%二氧化碳培养箱内培养。最佳诱导时间处理后,使用胰蛋白酶消化液处理细胞后收集细胞悬液,离心弃上清,细胞沉淀转移至-80 ℃超低温冰箱保存备用。

1.3 不同诱导时间下肝细胞活性的测定

稳定传代的肝细胞制备细胞悬液,以1×10³个/孔接种于96孔板,每孔100 μL,设立空白对照孔(不含细胞的培养基),每组3个重复。按1.2方法处理后,分别于0、3、6、9、12、15、24 h后更换为含10% CCK-8的培养基。37 ℃、5%二氧化碳培养箱内孵育4 h后,使用酶标仪测定450 nm下的吸光度值,计算不同诱导时间下肝细胞活性,确定TMAO最佳诱导时间。细胞活性计算公式如下:
细胞活性(%)=[(试验孔吸光度值-空白孔吸光度值)/(对照孔吸光度值-空白孔吸光度值)]×100。

1.4 肝细胞脂滴沉积的测定

按1.2方法调整细胞密度至6×10⁵个/mL,接种于6孔板(2 mL/孔)。诱导完成后弃去培养基,磷酸盐缓冲液(PBS)洗涤2次,油红O固定液固定30 min后弃去。预冷的PBS洗涤2次,60%异丙醇浸润30 s后弃去。油红O染色液浸染20 min后弃去,60%异丙醇分化至间质清晰,蒸馏水洗除残留。Mayer苏木素染色液染色1 min,蒸馏水洗涤5次,油红O缓冲液孵育1 min后弃去。最后用适量蒸馏水覆盖细胞后显微镜观察并拍照。利用异丙醇法进行油红O定量,PBS洗涤细胞后加入200 μL异丙醇缓慢振荡15 min,离心取150 μL上清与纯异丙醇加入96孔板,用酶标仪测定490 nm下的吸光度值。

1.5 肝细胞和培养液中脂质生化指标的测定

按1.2方法处理后收集细胞和培养液样品。将培养液样品在4 ℃、300×g离心10 min,取上清液用于测定。细胞样品经离心弃上清后,细胞沉淀加入200 μL PBS重悬,在冰水浴中超声破碎(300 W)5次,每次3~5 s,间隔30 s,所得匀浆液不离心直接用于检测。参照南京建成生物工程研究所的试剂盒测定细胞和培养液中TG、总胆固醇(total cholesterol,TCHO)、低密度脂蛋白胆固醇(low density lipoprotein-cholesterol,LDL-C)、高密度脂蛋白胆固醇(high density lipoprotein-cholesterol,HDL-C)和总蛋白(total ptotein,TP)含量,具体操作步骤参照试剂盒说明书。

1.6 肝细胞和培养液中微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,MTTP)和载脂蛋白-B100(apolipoprotein-B100,Apo-B100)含量的测定

按1.2方法处理细胞(调整浓度至约1×10⁶个/mL),诱导后收集细胞及培养液样品。细胞样品经反复冻融研磨至细胞完全破碎,然后分别将细胞和培养液样品750×g离心20 min,取上清液采用牛MTTP、Apo-B100酶联免疫分析试剂盒(武汉基因美生物科技有限公司)进行测定。

1.7 PPARα信号通路关键基因和蛋白表达量的检测

采用Trizol法提取2组细胞样品的总RNA,并用微量分光光度计测定RNA的浓度与纯度。使用ABScript Ⅲ RT Master Mix for qPCR with gDNA Remover(武汉爱博泰克生物科技有限公司)试剂将RNA逆转录成cDNA,反应条件为37 ℃、2 min,55 ℃、15 min,85 ℃、5 min,4 ℃至结束。通过普通PCR扩增和核酸凝胶电泳技术检测逆转录产物的特异性和扩增效率,PCR扩增反应程序见表1,基因引物序列见表2。然后使用2×Universal SYBR Green Fast qPCR Mix(武汉爱博泰克生物科技有限公司)进行实时荧光定量PCR(RT-qPCR),RT-qPCR扩增反应程序见表3。以β-actin为内参基因,用2-ΔΔCt法计算得到目的基因的mRNA相对表达水平。
表1 PCR扩增反应程序

Table 1 Reaction procedure for PCR amplification

步骤Steps 温度Temperature/℃ 时间Time 循环数Cycle number
1 95 3 min


34
2 95 30 s
3 55~63 30 s
4 72 1 min
5 72 5 min 1
6 12 至结束 1
表2 基因引物序列

Table 2 Gene primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
扩增长度
Amplification length/bp
细胞色素P450家族27亚家族A成员1
CYP27A1
F:CACGACATCCAACACGCTGAC
R:CACACCCACCACTTCCTTATGC
91
过氧化物酶体增殖物激活受体α
PPARα
F:ACTCCACCTACAGAACAACCATCC
R:TGCGTGCTCCGTGACCAG
97
溶质载体家族27成员1
SLC27A1
F:CGGCGGTGGCGGAGATG
R:CTTCAGCAGTGGGTCCAGGAG
116
长链脂酰辅酶A合成酶1
ACSL1
F:TGCCACCGTGCTCACCTTC
R:TCCAGTCTCCAGCAACAGTCAG
110
3-羟基-3-甲基戊二酰辅酶A合酶1
HMGCS1
F:AGCTCTTGGGATGGACGGTA
R:ATAGCAACGGCTCCAACTCC
101
脂肪酸去饱和酶2
FADS2
F:TGGAGAGCATCGCCTGGTTC
R:TGAGAGGTAGCAAGGACGAAGG
88
表3 RT-qPCR扩增反应程序

Table 3 Reaction procedure for RT-qPCR amplification

步骤Steps 温度Temperature/℃ 时间Time 循环数Cycle number
预变性Pre degeneration 95 3 min 1

循环反应Circular reaction
95 5 s
45
60 32 s
熔解曲线Melting curve 仪器自动设置
按照全蛋白提取试剂盒的操作步骤提取细胞样品中的全蛋白,并使用BCA蛋白浓度测定试剂盒测定其浓度。随后将十二烷基磺酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)上样缓冲液与蛋白样品按1∶4的比例混匀后煮沸,进行电泳。电泳完成后将凝胶转膜至聚偏二氟乙烯(PVDF)膜上,用含5%脱脂奶粉的TBST溶液在室温封闭1.5 h。封闭完成后,用TBST溶液洗膜3~5次(10 min/次),将膜置于一抗溶液中4 ℃平缓摇动过夜。次日,用TBST溶液洗膜3~5次(10 min/次),将膜置于二抗溶液中室温孵育1 h。最后,用TBST溶液洗膜3~5次(10 min/次),滴加发光工作液孵育3 min后进行显色成像。蛋白相对表达水平归一化为β-actin表达,使用Image J 1.54软件测定Western Blot条带灰度值。

1.8 数据统计与分析

使用GraphPad Prism 8.0软件的独立样本t检验法进行统计学分析,结果表示为“平均值±标准差(mean±SD)”。P<0.05为差异显著,P<0.01为差异极显著,P>0.05为差异不显著。

2 结果与分析

2.1 不同诱导时间对肝细胞活性的影响

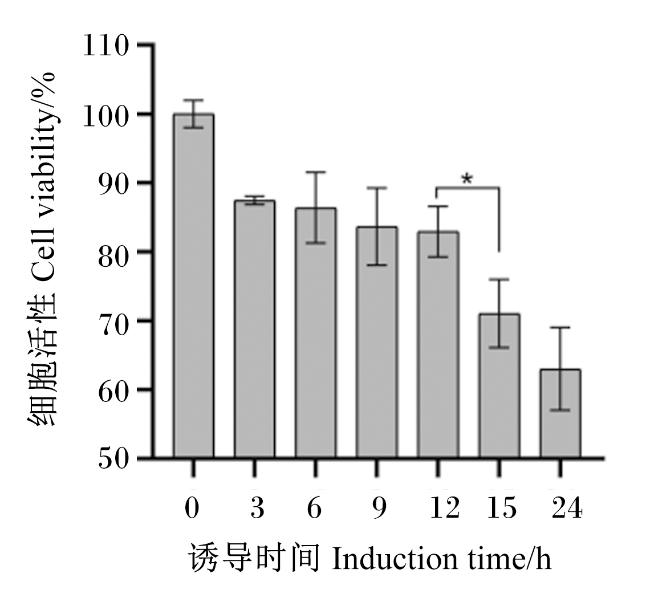
图1可知,400 μmol/L TMAO诱导肝细胞后,细胞活性随诱导时间的增加而逐渐下降。诱导3、6、9、12 h后的细胞活性均在80%以上,诱导15 h后的细胞活性显著降低至71.05%(P<0.05),诱导24 h后的细胞活性低于65%。因此,选择12 h为处理肝细胞的最佳诱导时间。
图1 不同诱导时间对细胞活性的影响

*表示差异显著(P<0.05),**表示差异极显著(P<0.01),ns表示差异不显著(P>0.05)。下图同。

Fig.1 Effects of different induction times on cell viability

* indicated significant difference (P<0.05), ** indicated extremely significant difference (P<0.01), and ns indicated no significant difference (P>0.05). The same as below.

2.2 TMAO对肝细胞脂滴沉积的影响

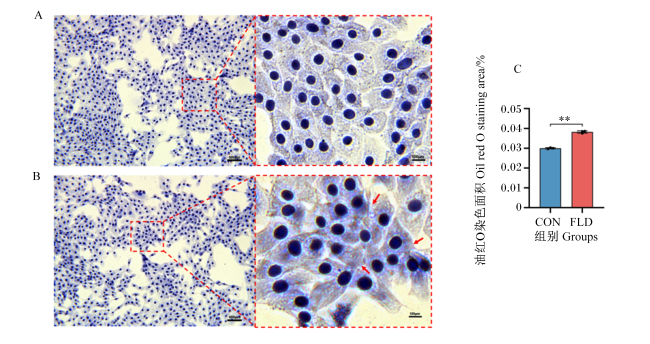
油红O染色结果显示,CON组肝细胞细胞核清晰,核膜完整,胞浆丰富,细胞间结合紧密,细胞内很少有红色脂滴(图2-A);FLD组肝细胞细胞核清晰,细胞质内可见红色脂滴增加,部分脂滴呈环状位于膜内侧,细胞间结合较松散(图2-B)。脂质定量分析进一步证实,FLD组肝细胞油红O染色面积较CON组极显著增加(P<0.01)(图2-C)。结果提示,TMAO能够促进奶牛肝细胞脂质沉积。
图2 CON组(A)和FLD组(B)细胞油红O染色结果(20×)及脂质积累定量结果(C)

Fig.2 Oil red O staining results of cells in CON group (A) and FLD group (B) (20×) and quantitative results of lipid accumulation (C)

2.3 TMAO对肝细胞和培养液中脂质生化指标的影响

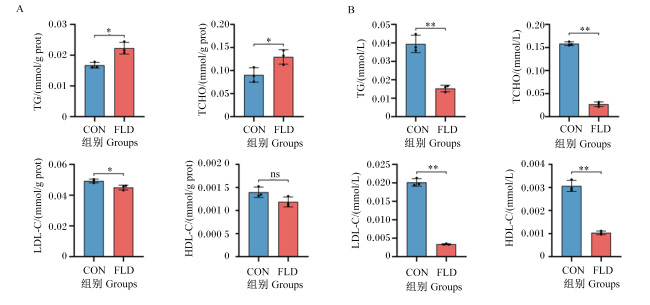
与CON组相比,FLD组肝细胞中TG和TCHO含量显著升高(P<0.05),LDL-C含量显著降低(P<0.05),HDL-C含量无显著变化(P>0.05)(图3-A)。与CON组相比,FLD组培养液中TG、TCHO、LDL-C和HDL-C含量均极显著降低(P<0.01)(图3-B)。结果表明,奶牛肝细胞经TMAO处理后脂质合成增强,脂质分解及运输受阻。这种异常代谢状态可能导致脂质在细胞内无法正常代谢和转运,最终在细胞内堆积。
图3 TMAO对肝细胞(A)和培养液中(B)脂质生化指标的影响

TG:甘油三酯 triglyceride;TCHO:总胆固醇 total cholesterol;LDL-C:低密度脂蛋白胆固醇 low density lipoprotein-cholesterol;HDL-C:高密度脂蛋白胆固醇 high density lipoprotein-cholesterol。

Fig.3 Effects of TMAO on lipid biochemical indices in hepatocytes (A) and culture medium (B)

2.4 TMAO对肝细胞和培养液中MTTP和Apo-B100含量的影响

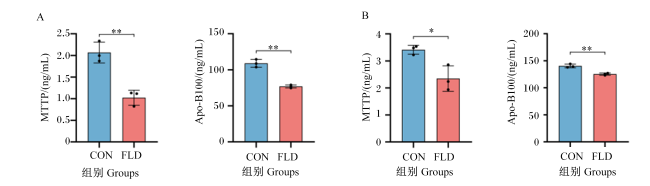
与CON组相比,FLD组肝细胞中MTTP和Apo-B100含量极显著降低(P<0.01)(图4-A)。与CON组相比,FLD组培养液中MTTP含量显著降低(P<0.05),Apo-B100含量极显著降低(P<0.01)(图4-B)。结果表明,TMAO能够抑制奶牛肝细胞载脂蛋白MTTP和Apo-B100的生成。
图4 TMAO对肝细胞(A)和培养液(B)中MTTP和Apo-B100含量的影响

MTTP:微粒体甘油三酯转运蛋白 microsomal triglyceride transfer protein;Apo-B100:载脂蛋白-B100 apolipoprotein-B100。

Fig.4 Effects of TMAO on contents of MTTP and Apo-B100 in hepatocytes (A) and culture medium (B)

2.5 TMAO对PPARα信号通路关键基因和蛋白表达的影响

表4可知,对PPARα信号通路中脂肪生成基因(FADS2)、脂肪酸代谢基因[溶质载体家族27成员1(solute carrier family 27 member 1,SLC27A1)、ACSL1]、脂氧化基因(PPARα)和胆固醇代谢基因[细胞色素P450家族27亚家族A成员1(cytochrome P450 family 27 subfamily member 1,CYP27A1)、HMGCS1]的mRNA相对表达水平进行检测,与CON组相比,FLD组肝细胞中CYP27A1和SLC27A1的mRNA相对表达水平显著上升(P<0.05),FADS2、HMGCS1、ACSL1和PPARα的mRNA相对表达水平极显著上升(P<0.01)。
表4 TMAO对PPARα信号通路关键基因表达的影响

Table 4 Effects of TMAO on expression of key genes in PPARα signaling pathway

项目
Items
组别Groups P
P-value
CON FLD
脂肪酸去饱和酶2 FADS2 1.012±0.167 2.342±1.266 0.006 6
3-羟基-3-甲基戊二酰辅酶A合酶1 HMGCS1 1.003±0.078 4.920±1.075 <0.000 1
长链脂酰辅酶A合成酶1 ACSL1 1.005±0.107 2.228±1.031 0.002 7
过氧化物酶体增殖物激活受体α PPARα 1.005±0.104 1.524±0.428 0.002 8
溶质载体家族27成员1 SLC27A1 1.009±0.141 1.123±0.058 0.039 7
细胞色素P450家族27亚家族A成员1 CYP27A1 1.008±0.142 1.330±0.331 0.016 5
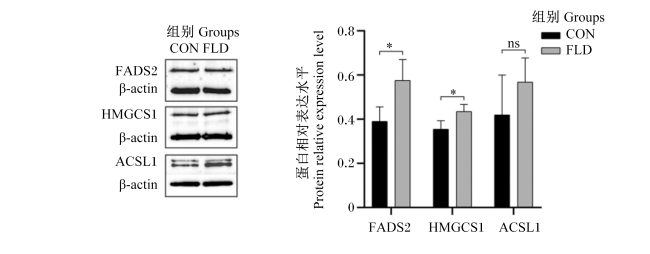
图5可知,Western Blot验证结果显示,与CON组相比,FLD组肝细胞中FADS2和HMGCS1的蛋白相对表达水平显著上升(P<0.05),ACSL1的蛋白相对表达水平上升,但差异不显著(P>0.05)。RT-qPCR和Western Blot结果与该样本转录组和蛋白组测序结果[16]基本一致。结果表明,TMAO导致奶牛肝细胞PPARα信号通路关键基因和蛋白的表达发生改变。
图5 TMAO对PPARα信号通路关键蛋白表达的影响

FADS2:脂肪酸去饱和酶2 fatty acid desaturase 2;HMGCS1:3-羟基-3-甲基戊二酰辅酶A合酶1 3-hydroxy-3-methylglutaryl coenzyme A synthetase 1;ACSL1:长链脂酰辅酶A合成酶1 long-chain acyl coenzyme A synthetases 1;β-actin:β-肌动蛋白。

Fig.5 Effects of TMAO on expression of key proteins in PPARα signaling pathway

3 讨论

3.1 TMAO对奶牛肝细胞脂质蓄积的影响

奶牛脂肪肝形成的核心病理特征是肝细胞内TG异常积累,其含量可直接反映脂质蓄积程度。研究表明,脂肪肝奶牛肝脏组织的脂滴荧光强度及TG含量较健康奶牛极显著升高[17]。值得注意的是,Nian等[18]通过动物模型发现,TMAO干预能够导致肝细胞红色脂滴明显增多,并伴随TG含量显著上升。本研究结果进一步发现,TMAO在奶牛肝细胞中同样具有促进脂质沉积的作用。肝脏TG主要通过极低密度脂蛋白(very low density lipoprotein,VLDL)转运至肝外,而胆固醇作为VLDL合成的重要组分,其稳态受合成、分解与转运调控。其中,胆固醇7α-羟化酶(cholesterol 7-alpha hydroxylase,CYP7A1)作为胆汁酸合成的限速酶,主导胆固醇向胆汁酸的转化过程。Schlegel等[19]研究发现,泌乳期奶牛肝脏中胆固醇合成相关基因表达上调,提示肝脏内胆固醇代谢发生改变。本研究发现,TMAO导致奶牛肝细胞内TCHO含量显著增加,这可能与其抑制CYP7A1表达导致胆固醇分解受阻密切相关[20]。Yang等[21]研究发现,与健康奶牛相比,脂肪肝奶牛肝脏TG含量显著升高,而血浆LDL-C含量显著降低。本研究同样发现,TMAO处理后奶牛肝细胞中LDL-C含量显著降低,且培养液中TCHO、LDL-C和HDL-C含量均显著降低。鉴于LDL-C是肝脏向外周组织(如脂肪组织和肾上腺)转运胆固醇的主要血浆载体,而HDL-C通过逆向转运促进肝外组织胆固醇的分解代谢。由此推断,TMAO可能通过双重途径加剧奶牛肝细胞脂质代谢紊乱,一方面通过抑制CYP7A1介导的胆固醇分解代谢;另一方面通过干扰LDL-C和HDL-C功能阻碍胆固醇转运过程,最终导致细胞内TCHO异常蓄积。然而,上述结果是基于奶牛肝细胞模型所得,TMAO在奶牛肝脏中是否引发类似的变化还需通过动物模型进一步验证。

3.2 TMAO对奶牛肝细胞载脂蛋白的影响

脂蛋白介导的脂质转运效率与其核心载脂蛋白的功能密切相关。在载脂蛋白B族蛋白中,全长Apo-B100作为哺乳动物肝脏合成的主要成分,不仅是VLDL和低密度脂蛋白(low-density lipoprotein,LDL)的关键结构蛋白,更通过其配体功能介导脂蛋白与特异性受体的结合,在TG与内源性胆固醇运输以及VLDL组装和分泌等环节发挥重要作用。MTTP通过将TG等脂质转移至内质网腔内的Apo-B100脂蛋白颗粒中,驱动肝内脂质向肝外组织的转运过程。当MTTP含量降低到正常水平的50%时,可引发Apo-B100合成量减少30%左右,这种依赖性抑制效应直接限制VLDL的分泌能力[22]。Marcos等[23]研究进一步证实,反刍动物肝脏Apo-B100合成不足是VLDL分泌速率降低的主要因素。而Shindo等[24]则通过MTTP过表达试验证明,增强MTTP表达可促进VLDL的合成与输出,有效缓解脂肪肝模型小鼠的肝脏脂质沉积。这些研究表明,肝脏MTTP和Apo-B100含量是VLDL组装及TG转运出肝脏的重要影响因素。本研究发现,TMAO导致奶牛肝细胞和培养液中MTTP和Apo-B100含量显著降低,表明TMAO可能通过抑制肝细胞内MTTP和Apo-B100的合成,进而阻碍VLDL组装与分泌过程,最终加剧TG等脂质在细胞内异常蓄积。

3.3 TMAO对PPARα信号通路的影响

作为核受体转录因子,PPARα在肝脏、肾脏及肌肉组织中通过配体激活机制发挥核心调控作用。其通过与RXR形成强制性异二聚体,特异性结合靶基因启动子区域上的过氧化物酶体增殖物反应元件(peroxisome proliferator response element,PPRE),直接调控FADS2、HMGCS1和ACSL1的表达[25]。TMAO作为一种肠道菌群代谢产物,已被证明具有调节畜禽脂质沉积的作用[26]。我们前期研究观察到奶牛产后0~7 d血清TMAO含量显著上升[27],此阶段与奶牛脂肪肝高发期相吻合。Tan等[28]研究表明,TMAO可通过抑制肝脏法尼醇X受体(farnesoid X receptor,FXR)信号传导加重高脂饮食小鼠的肝脏脂肪变性。作为胆汁酸合成的主要受体,FXR的激活可以通过调节PPARα表达促进脂肪酸氧化并减少肝脂质积累[29]。目前已知TMAO、PPARα和脂质代谢之间存在交互网络,因此我们研究了TMAO对奶牛肝细胞脂质代谢的影响,并进一步探究其对PPARα信号通路所产生的影响。
FADS2作为PPARα信号通路的关键效应分子,在维持脂代谢稳态及脂肪肝病理进程中具有双重作用[30]。该基因在肝脏中高表达,其编码的δ6去饱和酶负责催化亚油酸和α-亚麻酸转化为具有生物活性的多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs),是PUFAs生物合成的限速酶[31]。FADS2介导的PUFAs一方面通过抑制ApoB-100合成,阻碍VLDL组装及TG转运[32];另一方面通过增强细胞膜脂质过氧化敏感性,促使PUFAs与细胞内游离铁或含铁酶发生芬顿反应,导致脂质过氧化物异常累积,这一过程已被证实可加重脂肪肝病程[33-35]。李凡[36]采用多组学技术发现,牛前体脂肪细胞中FADS2过表达可增强脂质沉积相关基因表达,促进不饱和脂肪酸合成与脂滴蓄积。遗传学研究进一步证实,FADS2基因rs174546位点与TG含量升高和LDL含量降低密切相关[37]。本研究发现,TMAO可导致奶牛肝细胞出现TG含量显著升高并伴随Apo-B100和LDL-C含量显著降低的特征性改变,这些变化可能与TMAO诱导的FADS2基因和蛋白表达上调有关。然而,当前发现仍需通过动物模型试验验证,进而解析TMAO对奶牛肝脏PPARα信号通路关键基因和蛋白的调控作用。
HMGCS1作为胆固醇合成与酮体生成的关键酶,负责催化乙酰辅酶A(acetyl-CoA)与乙酰乙酰辅酶A(acetoacetyl-CoA)缩合生成3-羟基-3-甲基戊二酰辅酶A(3-hydroxy-3-methyl glutaryl CoA,HMG-CoA)。HMG-CoA一方面在HMG-CoA裂解酶(HMG-CoA lyase,HMGCL)作用下生成乙酰乙酸,后进一步转化为β-羟基丁酸(β-hydroxybutyrate,BHBA)和丙酮;另一方面在HMG-CoA还原酶(HMG-CoA reductase,HMGCR)催化下还原为甲羟戊酸(mevalonic acid,MVA),后进一步合成胆固醇。有研究发现,藁本内酯通过不可逆结合HMGCS1的Cys129位点抑制酶活性,从而降低胆固醇合成并改善高脂肪饮食小鼠的脂代谢紊乱[38]。这一发现也在Ma等[39]研究中得以验证。值得关注的是,泌乳早期奶牛肝脏中HMGCS1的mRNA和蛋白表达水平显著升高[40]。本研究观察到TMAO干预后奶牛肝细胞TCHO含量显著增加,可能是HMGCS1 mRNA和蛋白相对表达水平上升所致。
ACSL1作为脂肪酸活化酶,通过催化游离长链脂肪酸生成脂酰辅酶A参与脂代谢调控[41]。该酶在肝脏、脂肪组织及心脏中表达,其过表达可通过激活PPARγ信号通路抑制脂肪酸β氧化,进而导致TG异常蓄积[42]。在反刍动物研究中,Zhao等[43]研究发现,ACSL1通过调控PUFAs合成影响牛脂肪细胞的脂滴形成。Loor等[44]进一步揭示,围产期奶牛ACSL1表达水平与肝脏TG含量和血清NEFA含量均呈正相关,而NEFA含量升高又会加剧肝脏TG蓄积。此外,SLC27A1是转运长链脂肪酸的重要蛋白,可以增强肝细胞对长链脂肪酸的摄取[45]。本研究结果显示,TMAO显著上调了奶牛肝细胞ACSL1和SLC27A1的表达,这可能是导致肝细胞TG含量显著升高的原因之一。
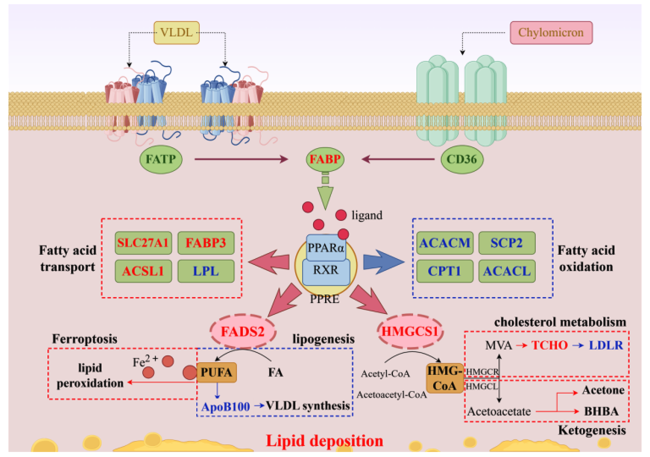
综上所述,肠道菌群代谢产物TMAO能够引起奶牛肝细胞脂质代谢紊乱并影响PPARα信号通路关键基因和蛋白的表达。PPARα信号通路在奶牛肝细胞脂质代谢中的调控机制见图6。这一发现为TMAO对PPARα信号通路的影响提供了新证据,并为奶牛脂肪肝的防治策略提供了新思路。然而,本研究仍存在局限性,主要关注了关键基因和蛋白的表达变化。未来研究一方面可借助基因沉默、过表达等分子生物学技术进一步明确TMAO是否通过PPARα信号通路介导奶牛脂质代谢紊乱;另一方面可通过动物试验深入探究TMAO对奶牛肝脏脂质代谢的调控作用。
图6 PPARα信号通路在奶牛肝细胞脂质代谢中的调控机制(用Figdraw绘制)

VLDL:极低密度脂蛋白 very low density lipoprotein;Chylomicron:乳糜微粒;FATP:脂肪酸转运蛋白 fatty acid transporter;CD36:脂肪酸转运蛋白CD36 fatty acid transporter CD36;FABP:脂肪酸结合蛋白 fatty acid binding protein;ligand:配体;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferators-activated receptor α;RXR:维甲酸X受体 retinoid X receptor;PPRE:过氧化物酶体增殖物反应元件 peroxisome proliferator response element;SLC27A1:溶质载体家族27成员1 solute carrier family 27 member 1;FABP3:脂肪酸结合蛋白3 fatty acid binding protein 3;ACSL1:长链脂酰辅酶A合成酶1 long-chain acyl coenzyme A synthetases 1;LPL:脂蛋白脂肪酶 lipoprotein lipase;FADS2:脂肪酸去饱和酶2 fatty acid desaturase 2;HMGCS1:3-羟基-3-甲基戊二酰辅酶A合酶1 3-hydroxy-3-methylglutaryl coenzyme A synthetase 1;Fatty acid transport:脂肪酸转运;Fatty acid oxidation:脂肪酸氧化;Ferroptosis:铁死亡;lipid peroxidation:脂质过氧化物;PUFA:多不饱和脂肪酸 polyunsaturated fatty acid;FA:脂肪酸 fatty acid;ApoB100:载脂蛋白-B100 apolipoprotein-B100;VLDL synthesis:极低密度脂蛋白分泌 very low density lipoprotein synthesis;lipogenesis:脂肪生成;Acetyl-CoA:乙酰辅酶A;Acetoacetyl-CoA:乙酰乙酰辅酶A;HMG-CoA:3-羟基-3-甲基戊二酰辅酶A 3-hydroxy-3-methyl glutaryl CoA;HMGCR:HMG-CoA还原酶 HMG-CoA reductase;MVA:甲羟戊酸 mevalonic acid;TCHO:总胆固醇 total cholesterol;LDLR:低密度脂蛋白 low-density lipoprotein receptor;cholesterol metabolism:胆固醇代谢;HMGCL:HMG-CoA裂解酶 HMG-CoA lyase;Acetoacetate:乙酰乙酸;Acetone:丙酮;BHBA:β-羟基丁酸;Ketogenesis:酮体生成;Lipid deposition:脂质沉积。

Fig.6 Regulatory mechanisms of PPARα signaling pathway in lipid metabolism in dairy cows' hepatocytes (draw with Figdraw)

4 结论

肠道菌群代谢产物TMAO可干扰奶牛肝细胞脂质代谢稳态,表现为细胞内TG、TCHO含量显著增加,LDL-C、MTTP和Apo-B100含量显著降低。同时,TMAO显著上调PPARα信号通路关键基因(FADS2、HMGCS1、ACSL1等)及蛋白(FADS2、HMGCS1)的表达。
[1]
GLUCHOWSKI N L, BECUWE M, WALTHER T C, et al. Lipid droplets and liver disease:from basic biology to clinical implications[J]. Nature Reviews Gastroenterology & Hepatology, 2017, 14(6):343-355.

[2]
赵慧颖, 余诗强, 赵玉超, 等. 肝脏-脂肪组织代谢串扰在围产期奶牛脂肪肝发展中的作用机制[J]. 畜牧兽医学报, 2023, 54(10):4105-4116.

ZHAO H Y, YU S Q, ZHAO Y C, et al. Mechanism of liver-adipose tissue crosstalk in the development of fatty liver in periparturient cows[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(10):4105-4116. (in Chinese)

[3]
BOBE G, YOUNG J W, BEITZ D C. Invited review:pathology,etiology,prevention,and treatment of fatty liver in dairy cows[J]. Journal of Dairy Science, 2004, 87(10):3105-3124.

[4]
FRANCQUE S, VERRIJKEN A, CARON S, et al. PPARalpha gene expression correlates with severity and histological treatment response in patients with non-alcoholic steatohepatitis[J]. Journal of Hepatology, 2015, 63(1):164-173.

[5]
PAWLAK M, LEFEBVRE P, STAELS B. Molecular mechanism of PPARalpha action and its impact on lipid metabolism,inflammation and fibrosis in non-alcoholic fatty liver disease[J]. Journal of Hepatology, 2015, 62(3):720-733.

[6]
ZOU J J, SONG Q B, SHAW P C, et al. Dendrobium officinale regulate lipid metabolism in diabetic mouse liver via PPAR-RXR signaling pathway:evidence from an integrated multi-omics analysis[J]. Biomedicine & Pharmacotherapy, 2024,173:116395.

[7]
TILG H, ADOLPH T E, TRAUNER M. Gut-liver axis:pathophysiological concepts and clinical implications[J]. Cell Metabolism, 2022, 34(11):1700-1718.

[8]
NIAN F L, CHEN Y Y, XIA Q Y, et al. Gut microbiota metabolite trimethylamine N-oxide promoted NAFLD progression by exacerbating intestinal barrier disruption and intrahepatic cellular imbalance[J]. International Immunopharmacology, 2024, 142 (Pt.B):113173.

[9]
CHEN Y M, LIU Y, ZHOU R F, et al. Associations of gut-flora-dependent metabolite trimethylamine-N-oxide,betaine and choline with non-alcoholic fatty liver disease in adults[J]. Scientific Reports, 2016,6:19076.

[10]
DEHGHAN P, FARHANGI M A, NIKNIAZ L, et al. Gut microbiota-derived metabolite trimethylamine N-oxide (TMAO) potentially increases the risk of obesity in adults:an exploratory systematic review and dose-response Meta-analysis[J]. Obesity Reviews, 2020, 21(5):e12993.

[11]
ZHUANG R L, GE X Y, HAN L, et al. Gut microbe-generated metabolite trimethylamine N-oxide and the risk of diabetes:a systematic review and dose-response meta-analysis[J]. Obesity Reviews, 2019, 20(6):883-894.

[12]
FLORES-GUERRERO J L, POST A, VAN DIJK P R, et al. Circulating trimethylamine-N-oxide is associated with all-cause mortality in subjects with nonalcoholic fatty liver disease[J]. Liver International, 2021, 41(10):2371-2382.

[13]
JANEIRO M H, RAMÍREZ M J, MILAGRO F I, et al. Implication of trimethylamine N-oxide (TMAO) in disease:potential biomarker or new therapeutic target[J]. Nutrients, 2018, 10(10):1398.

[14]
YANG B M, TANG G M, WANG M T, et al. Trimethylamine N-oxide induces non-alcoholic fatty liver disease by activating the PERK[J]. Toxicology Letters, 2024,400:93-103.

[15]
孔维怡. 归芪益母口服液对产后奶牛脂质代谢的调节作用[D]. 硕士学位论文. 银川: 宁夏大学, 2023.

KONG W Y. Regulatory effects of Guigi Yimu oral liquid on lipid metabolism in postpartum dairy cows[D]. Master's Thesis. Yinchuan: Ningxia University, 2023. (in Chinese)

[16]
LI C L, WANG F F, MAO Y X, et al. Multi-omics reveals the mechanism of trimethylamine N-oxide derived from gut microbiota inducing liver fatty of dairy cows[J]. BMC Genomics, 2025, 26(1):10.

[17]
高畅鸿. FXR对脂肪肝奶牛肝脂代谢调控机制研究[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2023.

GAO C H. Regulation mechanism of liver fat metabolism by FXR in dairy cows with fatty liver[D]. Master's Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2023. (in Chinese)

[18]
NIAN F L, ZHU C, JIN N Y, et al. Gut microbiota metabolite TMAO promoted lipid deposition and fibrosis process via KRT17 in fatty liver cells in vitro[J]. Biochemical and Biophysical Research Communications, 2023,669:134-142.

[19]
SCHLEGEL G, RINGSEIS R, KELLER J, et al. Changes in the expression of hepatic genes involved in cholesterol homeostasis in dairy cows in the transition period and at different stages of lactation[J]. Journal of Dairy Science, 2012, 95(7):3826-3836.

[20]
KOETH R A, WANG Z N, LEVISON B S, et al. Intestinal microbiota metabolism of L-carnitine,a nutrient in red meat,promotes atherosclerosis[J]. Nature Medicine, 2013, 19(5):576-585.

[21]
YANG W, WANG S, ZHAO Y Y, et al. Regulation of cholesterol metabolism during high fatty acid-induced lipid deposition in calf hepatocytes[J]. Journal of Dairy Science, 2023, 106(8):5835-5852.

[22]
LEUNG G K, VÉNIANT M M, KIM S K, et al. A deficiency of microsomal triglyceride transfer protein reduces apolipoprotein B secretion[J]. Journal of Biological Chemistry, 2000, 275(11):7515-7520.

[23]
MARCOS E, MAZUR A, CARDOT P, et al. Serum apolipoproteins B and A-I and naturally occurring fatty liver in dairy cows[J]. Lipids, 1990, 25(9):575-577.

[24]
SHINDO N, FUJISAWA T, SUGIMOTO K, et al. Involvement of microsomal triglyceride transfer protein in nonalcoholic steatohepatitis in novel spontaneous mouse model[J]. Journal of Hepatology, 2010, 52(6):903-912.

[25]
FEIGE J N, GELMAN L, MICHALIK L, et al. From molecular action to physiological outputs:peroxisome proliferator-activated receptors are nuclear receptors at the crossroads of key cellular functions[J]. Progress in Lipid Research, 2006, 45(2):120-159.

[26]
李万全, 查安东, 谭碧娥. 菌群代谢物氧化三甲胺调控畜禽脂肪沉积的研究进展[J]. 中国畜牧杂志, 2023, 59(5):40-47.

LI W Q, ZHA A D, TAN B E. Research progress of trimethylamine oxide,a microbiota metabolite,on lipid metabolism in livestock and poultry[J]. Chinese Journal of Animal Science, 2023, 59(5):40-47. (in Chinese)

[27]
王菲菲, 孔维怡, 段静丹, 等. 奶牛围产后期血液代谢物动态变化规律研究[J]. 动物营养学报, 2023, 35(2):953-967.

WANG F F, KONG W Y, DUAN J D, et al. Study on dynamic change rules of blood metabolites in dairy cows during late perinatal period[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):953-967. (in Chinese)

[28]
TAN X Y, LIU Y, LONG J G, et al. Trimethylamine N-oxide aggravates liver steatosis through modulation of bile acid metabolism and inhibition of farnesoid X receptor signaling in nonalcoholic fatty liver disease[J]. Molecular Nutrition & Food Research, 2019, 63(17):e1900257.

[29]
DU J L, XIANG X J, XU D, et al. FXR,a key regulator of lipid metabolism,is inhibited by ER stress-mediated activation of JNK and p38 MAPK in large yellow croakers (Larimichthys crocea) fed high fat diets[J]. Nutrients, 2021, 13(12):4343.

[30]
HENDRIKS D, BROUWERS J F, HAMER K, et al. Engineered human hepatocyte organoids enable CRISPR-based target discovery and drug screening for steatosis[J]. Nature Biotechnology, 2023, 41(11):1567-1581.

[31]
王国杰, 田烨, 张慧英. 脂肪酸去饱和酶2基因在糖脂代谢中的研究进展[J]. 中国医学科学院学报, 2022, 44(1):158-163.

WANG G J, TIAN Y, ZHANG H Y. Research progress of fatty acid desaturase 2 gene in glycolipid metabolism[J]. Acta Academiae Medicinae Sinicae, 2022, 44(1):158-163. (in Chinese)

[32]
FERCHAUD-ROUCHER V, ZAIR Y, AGUESSE A, et al. Omega 3 improves both apoB100-containing lipoprotein turnover and their sphingolipid profile in hypertriglyceridemia[J]. Journal of Clinical Endocrinology & Metabolism, 2020, 105(10):dgaa459.

[33]
YAMANE D, HAYASHI Y, MATSUMOTO M, et al. FADS2-dependent fatty acid desaturation dictates cellular sensitivity to ferroptosis and permissiveness for hepatitis C virus replication[J]. Cell Chemical Biology, 2022, 29(5):799-810.e4.

[34]
DIXON S J, OLZMANN J A. The cell biology of ferroptosis[J]. Nature Reviews Molecular Cell Biology, 2024, 25(6):424-442.

[35]
ZHAO S N, GUO Y, YIN X Z. Lipid peroxidation in ferroptosis and association with nonalcoholic fatty liver disease[J]. Frontiers in Bioscience-Landmark, 2023, 28(12):332.

[36]
李凡. 牛脂肪细胞成脂分化过程基因——代谢产物的调控网络构建及FADS2调控不饱和脂肪酸生成的机制研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2023.

LI F. Construction of regulatory network of gene-metabolites during lipogenic differentiation of bovine adipocytes and mechanism of FADS2 regulation of unsaturated fatty acid[D]. Master's Thesis. Wuhan: Huazhong Agricultural University, 2023. (in Chinese)

[37]
BUCKLEY M T, RACIMO F, ALLENTOFT M E, et al. Selection in europeans on fatty acid desaturases associated with dietary changes[J]. Molecular Biology and Evolution, 2017, 34(6):1307-1318.

[38]
ZHANG K X, SHEN F K, LEI W, et al. Ligustilide covalently binds to Cys129 of HMGCS1 to ameliorate dyslipidemia[J]. Biomedicine & Pharmacotherapy, 2023,166:115323.

[39]
MA X Y, BAI Y P, LIU K X, et al. Ursolic acid inhibits the cholesterol biosynthesis and alleviates high fat diet-induced hypercholesterolemia via irreversible inhibition of HMGCS1 in vivo[J]. Phytomedicine, 2022,103:154233.

[40]
KESSLER E C, GROSS J J, BRUCKMAIER R M, et al. Cholesterol metabolism,transport,and hepatic regulation in dairy cows during transition and early lactation[J]. Journal of Dairy Science, 2014, 97(9):5481-5490.

[41]
LI L O, ELLIS J M, PAICH H A, et al. Liver-specific loss of long chain acyl-CoA synthetase-1 decreases triacylglycerol synthesis and beta-oxidation and alters phospholipid fatty acid composition[J]. Journal of Biological Chemistry, 2009, 284(41):27816-27826.

[42]
LI T T, LI X D, MENG H Y, et al. ACSL1 affects triglyceride levels through the PPARγ pathway[J]. International Journal of Medical Sciences, 2020, 17(6):720-727.

[43]
ZHAO Z D, BAI Y B, TIAN H S, et al. Interference with ACSL1 gene in bovine adipocytes:transcriptome profiling of circRNA related to unsaturated fatty acid production[J]. Genomics, 2021, 113(6):3967-3977.

[44]
LOOR J J, DANN H M, EVERTS R E, et al. Temporal gene expression profiling of liver from periparturient dairy cows reveals complex adaptive mechanisms in hepatic function[J]. Physiological Genomics, 2005, 23(2):217-226.

[45]
WU Q W, ORTEGON A M, TSANG B, et al. FATP1 is an insulin-sensitive fatty acid transporter involved in diet-induced obesity[J]. Molecular and Cellular Biology, 2006, 26(9):3455-3467.

Outlines

/