RESEARCH PAPER

Effects of Rumen-Protected Guanidinoacetic Acid on Growth Performance,Nutrient Apparent Digestibilities and Rumen Microbiota of Yaks

  • LI Jiajia , 1, 2 ,
  • WU Xia 1, 2 ,
  • FU Jianhui 1, 2 ,
  • ZHONG Jincheng 1, 2, 3 ,
  • SHI Haitao 1, 2, 3 ,
  • WANG Haibo , 1, 2, 3, *
Expand
  • 1 Key Laboratory of Animal Science of National Ethnic Affairs Commission of China, Southwest Minzu University, Chengdu 610041, China
  • 2 Key Laboratory of Qinghai-Tibetan Plateau Animal Genetic Resource Reservation and Utilization, Sichuan Province, Southwest Minzu University, Chengdu 610041, China
  • 3 SichuanZoige Alpine Wetland Ecosystem National Observation and Research Station, Southwest Minzu University, Chengdu 610041, China
* associate professor, E-mail:

Received date: 2025-05-16

  Online published: 2025-12-13

Abstract

This experiment was conducted to investigate the effects of rumen-protected guanidinoacetic acid (RPGAA) on growth performance, nutrient apparent digestibilities and rumen microbiota of yaks. Thirty healthy 4-year-old yaks with similar body weight were randomly divided into 3 groups with 10 replicates in each group and 1 yak in each replicate. Yaks in the control group were fed a basal diet, while others in the low-dose group (group L) and high-dose group (group H) were fed the basal diet supplemented with 600 and 1 200 mg/kg RPGAA, respectively. The pre-experiment lasted for 15 days, and the experiment lasted for 120 days. The results showed as follows: 1) compared with the control group, the average daily gain (ADG) of group H was significantly increased (P<0.05), and the feed to gain ratio (F/G) of group L and group H was significantly decreased (P<0.05). 2) There were no significant differences in the apparent digestibilities of crude protein (CP), organic matter (OM), ether extract (EE), neutral detergent fiber (NDF) and acid detergent fiber (ADF) among the groups (P>0.05). 3) At the phylum level, compared with the control group, the rumen Bacteroidota relative abundance of group L was significantly increased (P<0.05), and the Actinobacteriot and Synergistota relative abundances were significantly decreased (P<0.05); the rumen Candidatus_Thermoplasmatota relative abundance of group L and group H was significantly decreased (P<0.05). 4) At the genus level, compared with the control group, the rumen Mogibacterium and Eubacterium relative abundances of group L were significantly decreased (P<0.05), and the Lentimicrobium and Candidatus_Sulfidibacterium relative abundances were significantly increased (P<0.05); the rumen Alistipes relative abundance of group H was significantly decreased (P<0.05). 5) In the functional analysis of carbohydrate-active enzymes (CAZy), compared with the control group, the carbohydrate-binding modules (CBM) family and glycoside hydrolases (GH) family relative abundances of group L were significantly decreased (P<0.05), and the glycosyl transferases (GT) family relative abundance was significantly increased (P<0.05); the carbohydrate esterases (CE) family relative abundance of group L and group H was significantly decreased (P<0.05). In conclusion, dietary supplemented with RPGAA can improve the ADG and reduced the F/G of yaks, and the RPGAA can enhances fiber degradation capacity and suppresses energy loss by modulating rumen microbial ecology.

Cite this article

LI Jiajia , WU Xia , FU Jianhui , ZHONG Jincheng , SHI Haitao , WANG Haibo . Effects of Rumen-Protected Guanidinoacetic Acid on Growth Performance,Nutrient Apparent Digestibilities and Rumen Microbiota of Yaks[J]. Chinese Journal of Animal Nutrition, 2025 , 37(12) : 8414 -8426 . DOI: 10.12418/CJAN2025.686

牦牛作为藏区特有的反刍动物,不仅为当地藏族人民提供了丰富的肉和乳制品,还在高原地区的生活和经济发展中发挥着不可替代的作用[1]。近年来,随着生活水平的提高,人们对牛肉品质的要求也日益严格[2]。牦牛肉凭借其营养均衡、脂肪含量低、蛋白质含量高的特点,逐渐受到消费者的青睐[3],其产品近年来在川西北地区的产业化发展已初见成效[4]。这一趋势不仅推动了牦牛产业的发展,也为高原地区的经济转型提供了新的契机。然而,高原牧场季节性饲草短缺与牦牛生长周期长的矛盾,导致传统养殖模式下生产效能偏低。如何通过营养调控策略改善牦牛的能量代谢效率,成为提升产业竞争力的关键科学问题。
胍基乙酸(GAA)是一种氨基酸衍生物,是肌酸(Cr)及其磷酸化衍生物磷酸肌酸(PCr)天然的前体物质,肌酸在动物体内广泛存在于肌肉和神经组织中,是主要的能量供应物质[5-6]。通过补充GAA,机体能够合成更多的磷酸肌酸[7],从而为肌肉、大脑和性腺等组织提供高磷酸基团转移势能,促进能量向肌肉组织的分配。GAA由于安全无害、稳定性好、易于吸收、价格低廉,作为一种新型营养补充剂已被应用于动物生产,并表现出良好效果[8]。在反刍动物中,外源GAA能够调节瘤胃发酵过程,改变微生物群落结构,从而影响宿主的营养吸收和代谢[9],在经肠道吸收后,通过血液转运至肝脏,在胍基乙酸N-甲基转移酶(GAMT)催化下接受S-腺苷甲硫氨酸提供的甲基基团,最终合成肌酸[10],为机体所用。
GAA作为一种新型的饲料添加剂,在促进动物生长和改善生产性能方面具有显著效果,在以玉米和豆粕为基础的家禽饲粮中添加GAA可显著改善增重、饲料转化率和肌肉产量,在猪饲粮中添加GAA能够提高饲料转化率、胴体重和瘦肉率[11-12]。然而,在反刍动物饲粮中添加GAA可能被瘤胃微生物降解破坏或利用,未经保护的GAA的瘤胃降解率为54%~84%[13]。研究显示,过瘤胃胍基乙酸(RPGAA)24 h的瘤胃降解率可以控制在10%以内,且在人工肠液中8 h释放率高达99.76%[14]。RPGAA的应用可以精确调控GAA在满足瘤胃微生物需求的同时,最大限度地被肠道吸收以满足宿主自身需要。因此,本试验旨在探究RPGAA对牦牛生长性能、养分表观消化率及微生物区系的影响,旨在为合理应用RPGAA以提高反刍动物营养及促进其健康生长提供参考。

1 材料与方法

1.1 试验设计

本试验获得了西南民族大学动物伦理委员会的批准(批准编号:SMU-202501049)。试验选取30头4岁牦牛,按照体重相近的原则,随机分为3个组,每组10个重复,每个重复1头牦牛。对照组饲喂基础饲粮,低剂量组(L组)和高剂量组(H组)分别在基础饲粮中添加600和1 200 mg/kg的RPGAA(有效含量≥70%,过瘤胃率≥90%)。基础饲粮参照NRC(2016)肉牛饲养标准推荐值进行设计,其组成及营养水平见表1。试验期为135 d,包括15 d的预试期和120 d的正试期。牦牛均为单栏单饲,试验期间自由饮水和采食。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 32.00
玉米青贮Corn silage 25.00
燕麦干草Oat hay 25.00
豆粕Soybean meal 5.00
膨化大豆Extruded soybean 5.00
棉籽粕Cottonseed meal 3.00
麸皮Wheat bran 2.00
喷浆玉米皮Spraying corn husk 1.50
预混料Premix1) 1.50
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 10.51
粗蛋白质CP 13.09
有机物OM 90.87
粗脂肪EE 2.48
中性洗涤纤维NDF 38.48
酸性洗涤纤维ADF 21.80

1) 每千克预混料含 One kilogram of the premix contained the following:VA 40 000 IU,VD 5 500 IU,Fe 4 g,Zn 4 g,Cu 1 g,I 50 mg,Co 20 mg,Se 20 mg。

2) 代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 样品采集

1.2.1 饲粮样及粪样的采集

饲养试验最后1周,用四分法采集饲粮,置于-20 ℃冰箱保存,用于测定营养成分含量。试验结束前,连续3 d在05: 00、11: 00、17: 00和23: 00每组随机采集6头牦牛的粪样各200 g,并加入粪样鲜重1/4的10%酒石酸溶液混合,在65 ℃下烘干待测。

1.2.2 瘤胃液样品的采集

在正试期第120天晨饲后2 h,每组随机选取6头牦牛,采用入口式瘤胃管采集瘤胃液,废弃前50 mL混有唾液及口腔分泌物的液体后,抽取50 mL瘤胃液,经4层纱布过滤后分装于5 mL冻存管,液氮速冻后-80 ℃保存。每组随机取5个样品进行微生物宏基因组测序。

1.3 测定指标及方法

1.3.1 生长性能测定

每天记录牦牛的采食量,计算干物质采食量(DMI);在正试期开始和结束时,连续2 d于晨饲前重复测量体重并取平均值,得到初始体重(IBW)和终末体重(FBW),并计算平均日增重(ADG)和料重比(F/G)。

1.3.2 饲粮营养成分及养分表观消化率测定

饲粮和粪便样品中干物质(DM)、粗蛋白质(CP)、粗脂肪(EE)、粗灰分(Ash)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、盐酸不溶灰分(AIA)含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 6438—2007、GB/T 20806—2022、NY/T 1459—2022、GB/T 23742—2009的方法测定,有机物(OM)含量通过样品的DM含量减去Ash含量计算得出。养分表观消化率依据雷文华等[15]的方法进行计算。代谢能参考《中国饲料成分及营养价值表(2023年第34版)》计算得出。

1.3.3 DNA提取、文库构建和宏基因组测序

将采集的瘤胃液进行宏基因组测序,由上海美吉生物医药科技有限公司提取样品总DNA,使用Quantus荧光计(E6150,美国Promega公司)检测提取的DNA的浓度。在1%琼脂糖凝胶上检查提取的DNA的质量。使用非接触式聚焦超声破碎仪(M220,美国Covaris公司)将提取的DNA片段化至平均大小约350 bp,构建文库后,在Illumina MiSeq平台上完成测序。原始数据经质控优化后得到有效数据,随后进行物种注释和差异比较分析。原始数据已存入NCBI序列读数档案(SRA)数据库(编号:PRJNA1253189)。

1.3.4 序列质量控制和基因组组装

使用fastp 0.20.1软件[16](https://github.com/OpenGene/fastp)剪切序列两端的adapter序列,过滤掉平均质量低于20、质量剪切后长度小于50 bp的reads,保留高质量的reads数据。使用BWA 0.7.9a软件[17](https://bio-bwa.sourceforge.net)采用默认参数将质控reads比对到宿主DNA序列,并去除比对上的污染reads,获得后续分析需要的质量更好的序列。使用megahit拼接组装后保留的最短contig长度默认为300 bp。使用MetaGene软件[18](http://metagene.cb.k.u-tokyo.ac.jp)对拼接所得的Contigs进行开放阅读框架(ORFs)预测,筛选出长度不短于100 bp的ORFs,并将其翻译成氨基酸序列,获得ORFs的核酸序列和氨基酸序列用于后续分析。

1.4 数据统计分析

使用Excel 2021初步处理数据,再用SPSS 27.0软件中的单因素方差分析(one-way ANOVA)程序对试验数据进行统计分析,并采用Duncan氏法进行组间多重比较。结果以“平均值±标准误”表示,P<0.05表示差异显著,P>0.05表示差异不显著,0.05≤P<0.10表示差异有显著趋势。

2 结 果

2.1 RPGAA对牦牛生长性能的影响

表2可知,各组之间FBW和DMI均无显著差异(P>0.05)。与对照组相比,H组的ADG显著增加(P<0.05),L组和H组的F/G显著降低(P<0.05)。
表2 RPGAA对牦牛生长性能的影响

Table 2 Effects of RPGAA on growth performance of yaks

项目
Items
组别Groups P
P-value
对照Control L H
初始体重IBW/kg 140.00±13.48 139.58±14.34 136.92±13.49 0.985
终末体重FBW/kg 262.25±16.06 284.58±22.89 300.75±21.57 0.428
干物质采食量DMI/(kg/d) 5.97±0.51 5.75±0.45 5.95±0.48 0.954
平均日增重ADG/(kg/d) 0.92±0.05b 1.09±0.07ab 1.23±0.07a 0.011
料重比F/G 6.55±0.60a 5.27±0.16b 4.84±0.32b 0.024

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different lowercase letters superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 RPGAA对牦牛养分表观消化率的影响

表3可知,各组之间CP、OM、EE、NDF、ADF表观消化率均无显著差异(P>0.05)。
表3 RPGAA对牦牛养分表观消化率的影响

Table 3 Effects of RPGAA on nutrient apparent digestibilities of yaks %

项目
Items
组别Groups P
P-value
对照Control L H
粗蛋白质CP 60.29±0.32 61.21±1.39 62.47±1.31 0.407
有机物OM 67.42±0.78 66.80±0.83 69.07±0.70 0.134
粗脂肪EE 65.20±1.70 64.70±1.98 68.47±2.49 0.403
中性洗涤纤维NDF 49.83±2.15 47.03±0.65 52.01±1.77 0.135
酸性洗涤纤维ADF 40.02±2.56 38.94±0.73 45.09±2.35 0.110

2.3 RPGAA对牦牛瘤胃微生物区系的影响

2.3.1 瘤胃微生物宏基因组测序结果

本试验对瘤胃微生物宏基因组原始测序结果经严格质控处理后,最终获得647 089 142条优化后的reads,平均每个样本拥有43 139 276条reads。运用MeGahit软件进行拼接组装工作,设定contig长度不小于300 bp作为筛选条件,并选取拼接效果最佳序列,对其进行ORFs预测,将基因序列长度大于100 bp作为有效ORFs的筛选标准。拼接组装后共获得6 081 619条contigs,总碱基对长度达到4 913 971 804 bp,并预测出8 477 258个ORFs。在去冗余后,最终得到的基因数量为3 411 188个,占比40.24%。

2.3.2 瘤胃微生物Venn图

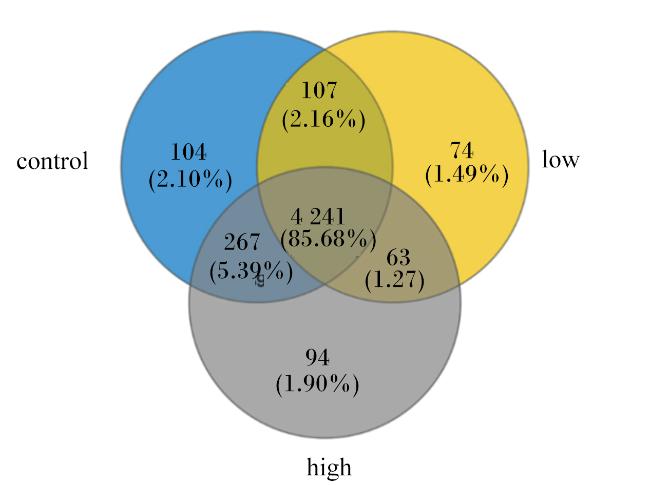
图1可知,对照组、L组和H组的操作分类单元(OTUs)数目分别为4 719、4 485、4 665个,共有的OTUs数目为4 241个,特有的OTUs数目分别为104、74、94个。
图1 瘤胃微生物Venn图

control:对照组 control group;low:L组 L group;high:H组 H group。下图同 the same as below。

Fig.1 Venn graph of rumen microorganisms

2.3.3 α多样性指数

3组中所有样本的覆盖率均等于1,表明本次测序结果代表了样本中微生物的真实情况。由表4可知,L组瘤胃微生物Chao1指数显著低于对照组(P<0.05)。各组之间Shannon指数和Simpson指数均无显著差异(P>0.05)。
表4 RPGAA对瘤胃微生物α多样性指数的影响

Table 4 Effects of RPGAA on alpha diversity indexes of rumen microorganisms

项目
Items
组别groups P
P-value
对照Control L H
Chao1指数Chao1 index 16 634.40±453.19a 14 605.80±576.55b 15 935.00±169.70ab 0.019
Shannon指数Shannon index 5.43±0.08 5.13±0.09 5.32±0.11 0.112
Simpson指数Simpson index 0.04±0.01 0.06±0.00 0.05±0.01 0.334

2.3.4 瘤胃门水平菌群结构和组成

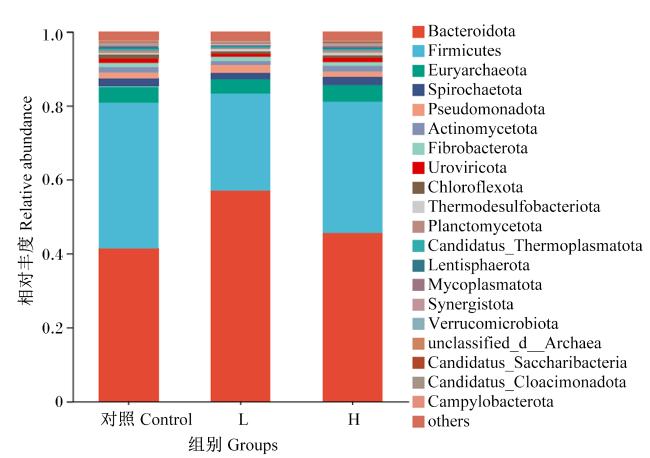
本次测序共得到223个门、410个纲、733个目、1 404个科、4 856个属、25 884个种。由图2可知,在门水平上,3组中拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)和广古菌门(Euryarchaeota)均为优势菌门,占总相对丰度的80%以上。
图2 瘤胃门水平菌群结构

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Euryarchaeota:广古菌门;Spirochaetota:螺旋体菌门;Pseudomonadota:变形菌门;Actinomycetota:放线菌门;Fibrobacterota:纤维杆菌门;Uroviricota:尾病毒门;Chloroflexota:绿弯菌门;Thermodesulfobacteriota:热脱硫菌门;Planctomycetota:浮霉菌门;Candidatus_Thermoplasmatota:候选热原体门;Lentisphaerota:黏胶球形菌门;Mycoplasmatota:支原体门;Synergistota:互养菌门;Verrucomicrobiota:疣微菌门;unclassified_d_Archaea:未分类的古菌域;Candidatus_Saccharibacteria:候选糖菌门;Candidatus_Cloacimonadota:候选污水单胞菌门;Campylobacterota:弯曲菌门;others:其他。

Fig.2 Rumen microflora structure at phylum level

表5可知,与对照组相比,L组的拟杆菌门相对丰度显著升高(P<0.05),放线菌门(Actinomycetota)和互养菌门(Synergistota)相对丰度显著降低(P<0.05);L组和H组的候选热原体门(Candidatus_Thermoplasmatota)相对丰度显著降低(P<0.05)。与对照组相比,L组的厚壁菌门相对丰度有显著下降的趋势(P=0.055);与L组相比,H组的浮霉菌门(Planctomycetota)相对丰度有显著增加的趋势(P=0.067)。
表5 RPGAA对牦牛瘤胃菌群组成的影响(门水平)

Table 5 Effects of RPGAA on rumen microflora composition of yaks (phylum level) %

项目
Items
组别Groups P
P-value
对照Control L H
拟杆菌门Bacteroidota 46.30±1.07b 57.51±3.81a 46.70±3.91b 0.049
厚壁菌门Firmicutes 34.44±0.48 25.97±2.62 34.35±3.46 0.055
广古菌门Euryarchaeota 4.33±0.54 3.73±0.86 4.59±0.46 0.639
螺旋体菌门Spirochaetota 2.31±0.27 1.76±0.48 2.20±0.38 0.581
变形菌门Pseudomonadota 1.53±0.22 2.12±0.73 1.38±0.10 0.481
放线菌门Actinomycetota 1.58±0.07a 0.99±0.11b 1.55±0.16a 0.007
纤维杆菌门Fibrobacterota 1.08±0.15 1.18±0.06 1.03±0.07 0.568
尾病毒门Uroviricota 1.19±0.10 0.81±0.12 1.18±0.23 0.207
绿弯菌门Chloroflexota 0.94±0.21 0.57±0.14 0.69±0.11 0.280
热脱硫菌门Thermodesulfobacteriota 0.64±0.03 0.60±0.14 0.64±0.06 0.933
浮霉菌门Planctomycetota 0.48±0.09 0.30±0.05 0.60±0.10 0.067
候选热原体门Candidatus_Thermoplasmatota 0.56±0.05a 0.38±0.05b 0.40±0.05b 0.034
黏胶球形菌门Lentisphaerota 0.57±0.18 0.24±0.07 0.45±0.07 0.196
支原体门Mycoplasmatota 0.36±0.06 0.28±0.07 0.49±0.12 0.273
互养菌门Synergistota 0.28±0.01a 0.20±0.03b 0.27±0.03a 0.041
疣微菌门Verrucomicrobiota 0.26±0.03 0.17±0.02 0.25±0.03 0.141
未分类的古菌域Unclassified_d__Archaea 0.18±0.03 0.14±0.02 0.17±0.03 0.734
候选糖菌门Candidatus_Saccharibacteria 0.23±0.04 0.17±0.01 0.19±0.02 0.287
候选污水单胞菌门Candidatus_Cloacimonadota 0.12±0.01 0.18±0.05 0.21±0.03 0.183
弯曲菌门Campylobacterota 0.27±0.08 0.16±0.05 0.14±0.03 0.238
其他Others 2.35±0.27 2.54±0.30 2.50±0.24 0.871

2.3.5 瘤胃属水平菌群结构和组成

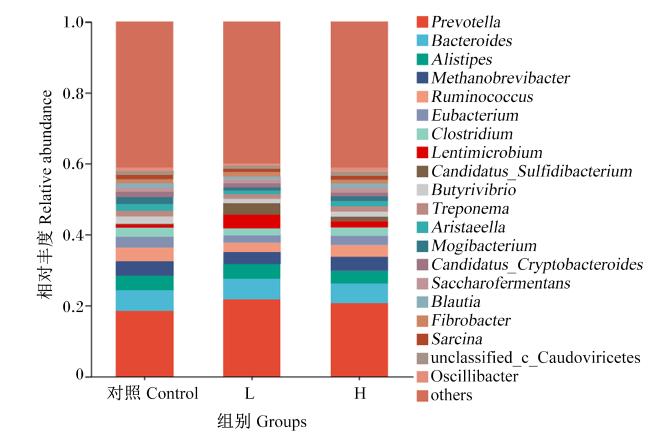
图3可知,在属水平上,3组中普雷沃氏菌属(Prevotella)和拟杆菌属(Bacteroides)为优势菌属,占总相对丰度的23%以上。
图3 瘤胃属水平菌群结构

Prevotella:普雷沃氏菌属;Bacteroides:拟杆菌属;Alistipes:另枝菌属;Methanobrevibacter:甲烷短杆菌属;Ruminococcus:瘤胃球菌属;Eubacterium:真杆菌属;Clostridium:梭菌属;Lentimicrobium:扁形菌属;Candidatus_Sulfidibacterium:候选硫杆菌属;Butyrivibrio:丁酸弧菌属;Treponema:螺旋体属;Aristaeella:芒小菌属;Mogibacterium:茂木菌属;Candidatus_Cryptobacteroides:候选隐拟杆菌属;Saccharofermentans:糖发酵菌属;Blautia:经黏液真杆菌属;Fibrobacter:纤维杆菌属;Sarcina:堆菌属;unclassified_c_Caudoviricetes:未分类尾病毒纲;Oscillibacter:颤螺菌属;others:其他。

Fig.3 Rumen microflora structure at genus level

表6可知,与对照组相比,H组的另枝菌属相对丰度显著降低(P<0.05),L组的茂木菌属(Mogibacterium)和真杆菌属(Eubacterium)相对丰度均显著降低(P<0.05)。与对照组和H组相比,L组的扁形菌属(Lentimicrobium)和候选硫杆菌属(Candidatus_Sulfidibacterium)相对丰度显著升高(P<0.05)。与对照组相比,L组的瘤胃球菌属(Ruminococcus)相对丰度有显著降低的趋势(P=0.067);与对照组和H组相比,经黏液真杆菌属(Blautia)相对丰度有显著降低的趋势(P=0.055)。
表6 RPGAA对牦牛瘤胃菌群组成的影响(属水平)

Table 6 Effects of RPGAA on rumen microflora composition of yaks (genus level) %

项目
Items
组别groups P
P-value
对照Control L H
普雷沃氏菌属Prevotella 18.43±2.02 21.68±0.40 20.76±1.91 0.374
拟杆菌属Bacteroides 5.96±0.36 5.96±0.25 5.56±0.16 0.491
另枝菌属Alistipes 4.15±0.21a 4.09±0.13a 3.53±0.13b 0.034
甲烷短杆菌属Methanobrevibacter 3.92±0.54 3.35±0.85 3.99±0.45 0.743
瘤胃球菌属Ruminococcus 3.85±0.37 2.58±0.35 3.34±0.31 0.067
真杆菌属Eubacterium 3.14±0.23a 2.06±0.24b 2.62±0.25ab 0.025
梭菌属Clostridium 2.63±0.26 1.94±0.32 2.30±0.26 0.269
扁形菌属Lentimicrobium 0.74±0.22b 3.90±0.87a 1.79±0.58b 0.011
候选硫杆菌属Candidatus_Sulfidibacterium 0.25±0.06b 3.40±0.90a 1.33±0.52b 0.009
丁酸弧菌属Butyrivibrio 2.03±0.47 1.21±0.08 1.38±0.16 0.152
螺旋体属Treponema 1.61±0.21 1.29±0.33 1.48±0.14 0.638
芒小菌属Aristaeella 1.96±0.72 0.94±0.20 1.42±0.18 0.296
茂木菌属Mogibacterium 1.89±0.19a 0.99±0.17b 1.38±0.22ab 0.022
候选隐拟杆菌属Candidatus_Cryptobacteroides 1.39±0.13 1.21±0.18 1.04±0.10 0.261
糖发酵菌属Saccharofermentans 1.21±0.18 1.09±0.11 1.29±0.18 0.670
经黏液真杆菌属Blautia 1.34±0.12 0.80±0.13 1.27±0.19 0.055
纤维杆菌属Fibrobacter 1.08±0.15 1.18±0.06 1.03±0.07 0.556
堆菌属Sarcina 1.18±0.10 0.80±0.14 1.20±0.21 0.160
未分类尾病毒纲Unclassified_c_Caudoviricetes 1.12±0.09 0.76±0.12 1.14±0.23 0.214
颤螺菌属Oscillibacter 1.07±0.07 0.99±0.17 0.86±0.23 0.701
其他Others 41.05±0.70 39.79±0.52 41.30±1.31 0.472

2.3.6 碳水化合物活性酶(carbohydrate-active enzymes,CAZy)功能分析
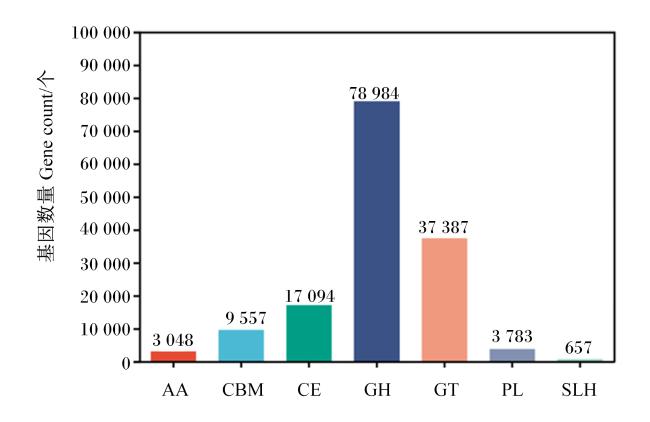
图4可知,经CAZy注释,共有150 510个基因比对到CAZy数据库中,其中糖苷水解酶(GH)家族基因78 984个,糖基转移酶(GT)家族基因37 387个,碳水化合物酯酶(CE)家族基因17 094个,碳水化合物结合模块(CBM)家族基因9 557个,多糖裂解酶(PL)家族基因3 783个,辅助氧化还原酶(AA)家族基因3 048个。共注释为642个CAZy,GH家族347个,GT家族101个,CBM家族77个,PL家族81个,CE家族18个,AA家族18个。
图4 CAZy数据库注释

AA:辅助氧化还原酶 auxiliary activities;CBM:碳水化合物结合模块 carbohydrate-binding modules;CE:碳水化合物酯酶 carbohydrate esterases;GH:糖苷水解酶 glycoside hydrolases;GT:糖基转移酶 glycosyl transferases;PL:多糖裂解酶 polysaccharide lyases;SLH:纤维素体模块 cellulosome modules。

Fig.4 Annotation of CAZy database

表7可知,对照组相对丰度最高的CAZy是GH家族(52.61%),其次是GT家族(27.46%),随后是CE家族(13.16%)、CBM家族(2.73%)、AA家族(2.35%)和PL家族(1.70%);L组相对丰度最高的CAZy是GH家族(47.35%),其次是GT家族(34.71%),随后是CE家族(11.86%)、AA家族(2.29%)、PL家族(1.93%)和CBM家族(1.86%);H组相对丰度最高的CAZy是GH家族(50.51%),其次是GT家族(30.69%),随后是CE家族(12.14%)、CBM家族(2.57%)、AA家族(2.09%)和PL家族(2.00%)。与对照组相比,L组和H组的CE家族相对丰度显著降低(P<0.05)。此外,L组的CBM家族和GH家族相对丰度显著低于对照组和H组(P<0.05),GT家族相对丰度显著高于对照组和H组(P<0.05)。各组之间AA家族和PL家族相对丰度均无显著差异(P>0.05)。
表7 RPGAA对牦牛瘤胃CAZy相对丰度的影响

Table 7 Effects of RPGAA on relative abundance of CAZy in rumen of yaks %

项目
Items
组别Groups P
P-value
对照Control L H
辅助氧化还原酶AA 2.35±0.14 2.29±0.38 2.09±0.17 0.762
碳水化合物结合模块CBM 2.73±0.10a 1.86±0.27b 2.57±0.15a 0.014
碳水化合物酯酶CE 13.16±0.18a 11.86±0.33b 12.14±0.32b 0.018
糖苷水解酶GH 52.61±0.74a 47.35±1.28b 50.51±0.77a 0.008
糖基转移酶GT 27.46±0.72b 34.71±1.76a 30.69±1.03b 0.005
多糖裂解酶PL 1.70±0.12 1.93±0.38 2.00±0.23 0.712

3 讨论

3.1 RPGAA对牦牛生长性能和养分表观消化率的影响

ADG是衡量动物生长性能的重要指标[19],其提升机制与营养代谢效率密切相关。研究表明,GAA可促进肌肉肌酸生物合成及磷酸肌酸储备[20-21],以优化细胞能量代谢,进而提升生长性能。Li等[22]研究表明,饲粮中添加0.05%~0.40%的GAA可显著提高24月龄晋江公牛ADG并降低F/G,表明GAA在反刍动物中同样具有效果。研究发现,饲粮中添加GAA增加了安格斯公牛DMI,且提高了OM、CP、NDF和ADF表观消化率[23-24]。本研究中,H组ADG较对照组显著提高,L和H组F/G较对照组显著降低,其原因可能是GAA提高了机体内肌酸和磷酸肌酸含量,为机体提供更多的能量,从而抑制机体糖原和蛋白质的分解,间接达到促生长的作用[25-26]。此外,本研究中RPGAA不影响牦牛DMI,且对牦牛的CP、OM、EE、NDF、ADF表观消化率无显著影响,可能是GAA对动物的适口性以及消化速度没有影响[27]。Speer等[28]曾通过荷斯坦阉公牛瘘管牛评估经过牛瘤胃或皱胃注入10或20 g/d GAA,基于GAA转化为血清肌酸和尿液中肌酐,计算得出未经包被处理GAA的过瘤胃率分别为47%和49%。鉴于RPGAA部分在瘤胃中降解,推测GAA在瘤胃中有能量紧迫快速补充作用,促进瘤胃菌群增殖和微生物蛋白的合成[29]

3.2 RPGAA对牦牛瘤胃微生物区系的影响

瘤胃微生物区系对反刍动物的健康、生长发育以及消化吸收过程具有重要意义[30],反刍动物瘤胃内存在动态平衡的微生物生态系统,包含细菌、古菌、真菌和原虫等多类群生物[31],以维持瘤胃功能和保持机体健康[32]。RPGAA可能通过重塑瘤胃菌群及增强抗氧化活性等多途径协同增效[33]。为进一步研究RPGAA对牦牛瘤胃微生物区系的影响,本研究利用Illumina测序平台对牦牛瘤胃微生物进行宏基因组测序。
本研究中,对3组牦牛的瘤胃微生物进行宏基因组分析发现,与对照组相比,L组瘤胃微生物群落丰富度低于对照组,联系其F/G显著降低,表明较低的瘤胃微生物多样性可能与更高的饲料利用率存在关联。这一结果与Li等[34]低饲料利用率肉牛的瘤胃微生物组的多样性和相对丰度比高饲料利用率肉牛的瘤胃微生物组的更高的结论一致。在整个瘤胃菌群结构上,3组的优势菌类别上相同,仅在微生物的相对丰度上有所差别,体现了环境条件相近,瘤胃微生物群落结构相对稳定。
在大多数研究中,反刍动物瘤胃的优势菌门为拟杆菌门和厚壁菌门[9,35],拟杆菌门和厚壁菌门中的微生物能分泌纤维降解酶来降解纤维、果胶和木糖等,拟杆菌门作为碳水化合物代谢和蛋白质分解的关键功能菌群,能够有效分解植物细胞壁中难降解的营养组分,同时参与蛋白质的肽键水解过程,从而释放宿主可利用的短链脂肪酸和氨态氮[36];而厚壁菌门则通过增强纤维分解酶活性,提升宿主对纤维类物质的消化吸收效率[37]。董晨扬[38]采用体外法探究GAA对瘤胃菌群影响的研究发现,厚壁菌门相对丰度随着GAA添加水平的升高呈现出先增加后减少的变化,而拟杆菌门相对丰度则呈现先减少再增加的变化。而本研究结果呈现相反的变化趋势,这可能是体外体系缺乏宿主与微生物之间的生理级联调控,如唾液缓冲系统、瘤胃上皮吸收及免疫调节。研究发现,患有亚急性瘤胃酸中毒的奶牛瘤胃中放线菌门相对丰度显著增加[39]。本研究中,与对照组相比,L组的瘤胃放线菌门相对丰度较低,这意味着添加低剂量的RPGAA可以降低牦牛患病风险。候选热原体门难以在体外培养,在厌氧消化环境中可能参与复杂碳水化合物分解[40],目前在牦牛瘤胃中作用的报道很少,其代谢机制尚不清楚,有待进一步研究。
本试验中,在属水平上,各组优势菌属均为普雷沃氏菌属。反刍动物中普雷沃氏菌属的高相对丰度与健康的微生物组成有关,该菌属具有多种酶的基因编码簇,特别是木聚糖酶GH10、β-木糖苷酶GH43、水解木聚糖和果胶,因此普雷沃氏菌属在降解木聚糖和果胶方面发挥着重要的作用[41]。本试验中,各组瘤胃普雷沃氏菌属相对丰度差异不显著,这意味着RPGAA的瘤胃释放率可能未超出普雷沃氏菌属的代谢稳态调节阈值,其功能冗余性或对底物竞争的适应性机制值得进一步探究。本试验中,与对照组相比,H组的瘤胃另枝菌属相对丰度显著降低。另枝菌属可通过调节色氨酸代谢通路影响宿主炎症反应[42-43],其相对丰度下降可能是RPGAA对瘤胃免疫微环境存在潜在调控效应。此外,与对照组相比,L组的茂木菌属和真杆菌属相对丰度显著降低,瘤胃球菌属相对丰度有显著降低的趋势;而扁形菌属、候选硫杆菌属相对丰度则显著升高。瘤胃球菌属、茂木菌属和真杆菌属均为厚壁菌门细菌,在反刍动物中,瘤胃球菌属主要栖息在瘤胃和后肠中,作为纤维降解的关键功能菌,对宿主健康具有重要影响[44],通过分泌糖苷水解酶催化纤维素与淀粉转化为乙酸、甲酸和少量乳酸[38],乙酸在产甲烷菌的作用下生成甲烷[45]。因此,瘤胃球菌属相对丰度降低可能抑制甲烷的生成,但具体机制需结合乙酸定量分析与甲烷通量测定进行验证。茂木菌属相对丰度下降可能改变挥发性脂肪酸谱系,该菌属已被证实通过苯丙氨酸裂解酶途径参与草本结构碳水化合物的定向发酵[46]。真杆菌属相对丰度的下降具有潜在病理生理意义,该菌属在结直肠癌患者及益生元缺乏的仔猪肠道中常呈现异常增殖[47],RPGAA可能通过调控营养生态位改善瘤胃黏膜健康状态。L组瘤胃经黏液真杆菌属相对丰度有显著增加的趋势,这可能与其独特的代谢特性相关,该菌属是近年来界定的功能性菌属,具有潜在益生特性,其功能主要体现在抗炎、改善代谢性疾病及对特定微生物的抗菌活性等方面[48]。根据瘤胃候选硫杆菌属相对丰度同步增加和扁形菌属的硫氧化基因表达特征[49],我们推测低剂量RPGAA可能通过硫代谢重塑瘤胃微环境,但其具体分子机制需通过宏转录组学进一步验证。
CAZy是一类能够降解多糖间糖苷键的酶[50],在生物过程中起着关键作用,广泛参与能量稳态调节、细胞形态维持、跨膜信号传递及免疫识别等生命活动[51]。瘤胃中的CAZy主要包括GH、PL、AA、CE、GT和CBM家族,其中GH家族可以降解植物细胞壁多糖,CE家族可以将发生了乙酰化和甲基化而无法被水解的非纤维素植物细胞壁多糖进行分解,GT家族可以转移活化糖中的残基,将其连接到蛋白质、核酸等分子上,使其发生糖基化[52]。本研究中,对照组、L组和H组瘤胃微生物的CAZy家族基因相对丰度分布呈现一致规律:GH家族基因相对丰度占据主导地位,其次为GT和CBM家族,而CE、AA及PL家族基因相对丰度相对较低。这一趋势与姜碧薇[53]关于酶菌协同处理荞麦秸秆与苜蓿对滩羊CAZy影响的研究结论一致,进一步验证了GH家族在反刍动物植物纤维降解中的核心作用。此外,RPGAA可显著影响GT家族基因相对丰度,其相对丰度随GAA添加水平呈现先升高后降低的动态变化,推测该现象可能是GAA的剂量效应:适量GAA通过增强糖基转移酶的底物亲和力,促进其催化糖基转移反应及微生物胞外多糖合成,而过量GAA可能导致酶构象改变或竞争性抑制,进而削弱其功能活性,这一发现为优化RPGAA添加策略提供了理论依据。

4 结论

饲粮中添加RPGAA可改善牦牛生长性能;通过宏基因组测序分析发现,饲粮中添加RPGAA改变了瘤胃微生物群落结构;RPGAA可能通过调控牦牛瘤胃菌群生态,增强纤维降解能力并抑制能量损耗。
[1]
WANG D D, ZHOU Y X, ZHENG X P, et al. Yak milk:nutritional value,functional activity,and current applications[J]. Foods, 2023, 12(11):2090.

DOI

[2]
贺丽霞, 刘爽, 汪书哲, 等. 牛EGR2基因转录本X1的CDS区克隆及表达特性分析[J]. 西南农业学报, 2023, 36(8):1770-1778.

HE L X, LIU S, WANG S Z, et al. Cloning and expression characteristics analysis of CDS region of bovine EGR2 gene transcript X1[J]. Southwest China Journal of Agricultural Sciences, 2023, 36(8):1770-1778. (in Chinese)

[3]
王瑞琪, 陈天均, 范文教, 等. 牦牛肉相关制品及其加工工艺研究进展[J]. 食品科技, 2024, 49(6):127-133.

WANG R Q, CHEN T J, FAN W J, et al. Progress of research on yak meat related products and their processing techniques[J]. Food Science and Technology, 2024, 49(6):127-133. (in Chinese)

[4]
杨树晶, 唐祯勇, 鲁岩. 四川省牦牛产业发展思考[J]. 畜牧兽医杂志, 2022, 41(5):133-134,138.

YANG S J, TANG Z Y, LU Y. Reflections on the development of yak industry in Sichuan[J]. Journal of Animal Science and Veterinary Medicine, 2022, 41(5):133-134,138. (in Chinese)

[5]
ZHANG B L, LIU N, HE Z, et al. Guanidino-acetic acid:a scarce substance in biomass that can regulate postmortem meat glycolysis of broilers subjected to pre-slaughter transportation[J]. Frontiers in Bioengineering and Biotechnology, 2020, 8:631194.

DOI

[6]
PORTOCARERO N, BRAUN U. The physiological role of guanidinoacetic acid and its relationship with arginine in broiler chickens[J]. Poultry Science, 2021, 100(7):101203.

DOI

[7]
ZHANG S Q, YIMAMU M, MA C, et al. Dietary guanidinoacetic acid supplementation improves rumen metabolism,duodenal nutrient flux,and growth performance in lambs[J]. Frontiers in Veterinary Science, 2025, 12:1528861.

DOI

[8]
LI X D, CHEN Z M, LI J T. Effects of guanidine acetic acid on the growth and slaughter performance,meat quality,antioxidant capacity,and cecal microbiota of broiler chickens[J]. Veterinary sciences, 2024, 11(11):550.

DOI

[9]
DONG C Y, WEI M L, JU J, et al. Effects of guanidinoacetic acid on in vitro rumen fermentation and microflora structure and predicted gene function[J]. Frontiers in Microbiology, 2023, 14:1285466.

DOI

[10]
刘西萍, 李洪涛, 张法玲, 等. 胍基乙酸的生物学作用及在猪和鸡生产中的应用[J]. 饲料工业, 2025, 46(6):49-55.

LIU X P, LI H T, ZHANG F L, et al. Biological function of guanidineacetic acid and its application in pig and poultry production[J]. Feed Industry, 2025, 46(6):49-55. (in Chinese)

[11]
王子苑, 舒健虹, 袁暘暘, 等. 胍基乙酸的代谢途径及其在动物生产中的应用[J]. 贵州农业科学, 2021, 49(1):70-74.

WANG ZI Y, SHU J H, YUAN Y Y, et al. Metabolic pathways of guanidine acetic acid and its application in animal production[J]. Guizhou Agricultural Sciences, 2021, 49(1):70-74. (in Chinese)

[12]
郭文伟, 佟垚毅, 王浩程, 等. 胍基乙酸在反刍动物上的研究进展[J]. 中国牛业科学, 2023, 49(1):61-63,67.

GUO W W, DONG Y Y, WANG H C, et al. Research progress of guanidinoacetic acid in ruminants[J]. China Cattle Science, 2023, 49(1):61-63,67. (in Chinese)

[13]
GENG Q, LIN W, YANG L B, et al. Rumen-protected guanidinoacetic acid improves growth performance in beef cattle under chronic heat stress by reshaping gut microbiota and modulating serum metabolism[J]. Frontiers in Microbiology, 2025, 18(16):1529596.

[14]
蒋青荣, 刘璇, 刘伟国, 等. 包被胍基乙酸体外释放评价[J]. 养殖与饲料, 2023, 22(2):28-30.

JIANG Q R, LIU X, LIU W G, et al. Release evaluation in vitro of coated guanidinoacetic acid[J]. Animals Breeding and Feed, 2023, 22(2):28-30. (in Chinese)

[15]
雷文华, 田宇轩, 徐垲琳, 等. 甜菜碱和包被甜菜碱对荷斯坦公牛生长性能、养分消化和瘤胃发酵的影响[J]. 动物营养学报, 2024, 36(10):6422-6431.

DOI

LEI W H, TIAN Y X, XU K L, et al. Effects of betaine and coated betaine on growth performance,nutrient digestion and rumen fermentation of Holstein bulls[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6422-6431. (in Chinese)

[16]
CHEN S F, ZHOU Y Q, CHEN Y R, et al. Fastp:an ultra-fast all-in-one FASTQ preprocessor[J]. Bioinformatics, 2018, 34(17):i884-i890.

[17]
LI H, DURBIN R. Fast and accurate short read alignment with Burrows-Wheeler transform[J]. Bioinformatics, 2009, 25(14):1754-1760.

DOI PMID

[18]
NOGUCHI H, PARK J, TAKAGI T. MetaGene:prokaryotic gene finding from environmental genome shotgun sequences[J]. Nucleic Acids Research, 2006, 34(19):5623-5630.

DOI

[19]
GU M J, JIANG H Y, MA F Y, et al. Multi-omics analysis revealed the molecular mechanisms affecting average daily gain in cattle[J]. International Journal of Molecular Sciences, 2025, 26(5):2343.

DOI

[20]
ZHANG S Q, ZANG C J, PAN J, et al. Effects of dietary guanidinoacetic acid on growth performance,guanidinoacetic acid absorption and creatine metabolism of lambs[J]. PLoS One, 2022, 17(3):e0264864.

DOI

[21]
EFSA Panel on Additives and Products or Substances used in Animal Feed (FEEDAP),BAMPIDIS V, AZIMONTI G, et al. Safety and efficacy of a feed additive consisting of guanidinoacetic acid for all animal species (Alzchem Trostberg GmbH)[J]. EFSA Journal, 2022, 20(5):e07269.

[22]
LI Z M, LIANG H, XIN J P, et al. Effects of dietary guanidinoacetic acid on the feed efficiency,blood measures,and meat quality of Jinjiang bulls[J]. Frontiers in Veterinary Science, 2021, 8:684295.

DOI

[23]
LI S Y, WANG C, WU Z Z, et al. Effects of guanidinoacetic acid supplementation on growth performance,nutrient digestion,rumen fermentation and blood metabolites in Angus bulls[J]. Animal, 2020, 14(12):2535-2542.

DOI

[24]
LIU Y J, CHEN J Z, WANG D H, et al. Effects of guanidinoacetic acid and coated folic acid supplementation on growth performance,nutrient digestion and hepatic gene expression in Angus bulls[J]. British Journal of Nutrition, 2021, 126(4):510-517.

DOI

[25]
AHMADIPOUR B, NAEINI S Z, SHARIFI M, et al. Growth performance and right ventricular hypertrophy responses of broiler chickens to guanidinoacetic acid supplementation under hypobaric hypoxia[J]. Journal of Poultry Science, 2018, 55(1):60-64.

DOI PMID

[26]
CÓRDOVA-NOBOA H A, OVIEDO-RONDÓN E O, SARSOUR A H, et al. Performance,meat quality,and pectoral myopathies of broilers fed either corn or sorghum based diets supplemented with guanidinoacetic acid[J]. Poultry Science, 2018, 97(7):2479-2493.

DOI

[27]
辛均平. 胍基乙酸对育肥期锦江黄牛生长性能、血液指标及肉品质的影响[D]. 硕士学位论文. 南昌: 江西农业大学, 2020.

XIN J P. Effects of guanidinoacetic acid on long performance,blood index and meat quality of Jinjiang yellow cattle in fattening period[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2020. (in Chinese)

[28]
SPEER H F, PEARL K A, TITGEMEYER E C. Relative bioavailability of guanidinoacetic acid delivered ruminally or abomasally to cattle[J]. Journal of Animal Science, 2020, 98(9):skaa282.

[29]
李增民. 胍基乙酸对肉牛瘤胃发酵功能、相关组织代谢影响及作用机理研究[D]. 博士学位论文. 南昌: 江西农业大学, 2021.

LI Z M. Study of the regulation mechanism of guanidinoacetic acid on rumen fermentation and related metabolism of tissue in beef cattle[D]. Ph.D.Thesis. Nanchang: Jiangxi Agricultural University, 2021. (in Chinese)

[30]
LI B, JIA G B, WEN D X, et al. Rumen microbiota of indigenous and introduced ruminants and their adaptation to the Qinghai-Tibetan plateau[J]. Frontiers in Microbiology, 2022, 13:1027138.

DOI

[31]
LIU C, CHENG J, XIE Y N, et al. Dynamic changes in rumen microbial diversity and community composition within rumen fluid in response to various storage temperatures and preservation times[J]. Veterinary Sciences, 2025, 12(3):234.

DOI

[32]
ZEINELDIN M, BARAKAT R, ELOLIMY A, et al. Synergetic action between the rumen microbiota and bovine health[J]. Microbial Pathogenesis, 2018, 124:106-115.

DOI PMID

[33]
MIZRAHI I, WALLACE R J, MORAÏS S. The rumen microbiome: balancing food security and environmental impacts[J]. Nature Reviews Microbiology, 2021, 19(9):553-566.

DOI PMID

[34]
LI F Y, GUAN L L. Metatranscriptomic profiling reveals linkages between the active rumen microbiome and feed efficiency in beef cattle[J]. Applied and Environmental Microbiology, 2017, 83(9):e00061-e00117.

[35]
孙丽琼, 国晓丹, 赵树生, 等. 基于宏基因组学的瘤胃微生物在反刍动物消化吸收上的研究进展[J]. 饲料研究, 2024, 47(21):158-163.

SUN L Q, GUO X D, ZHAO S S, et al. Research progress of rumen microorganisms in digestion and absorption of ruminants based on metagenomics[J]. Feed Research, 2024, 47(21):158-163. (in Chinese)

[36]
赵媛媛, 马青, 周路松, 等. 百里香对滩羊生长性能、屠宰性能及瘤胃菌群结构的影响[J]. 动物营养学报, 2025, 37(2):1127-1140.

DOI

ZHAO Y Y, MA Q, ZHOU L S, et al. Effects of thyme on growth performance,slaughter performance and rumen microflora structure of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):1127-1140. (in Chinese)

[37]
YE M, YU J P, SHI X X, et al. Polysaccharides catabolism by the human gut bacterium-Bacteroides thetaiotaomicron:advances and perspectives[J]. Critical Reviews in Food Science and Nutrition, 2021, 61(21):3569-3588.

DOI

[38]
董晨扬. 体外法研究胍基乙酸对瘤胃发酵、菌群结构和功能的影响[D]. 硕士学位论文. 通辽: 内蒙古民族大学, 2023.

DONG C Y. Effects of guanidineacetic acid on rumen fermentatio,microflora structure and function in vitro[D]. Master’s Thesis. Tongliao: Inner Mongolia Minzu University, 2023. (in Chinese)

[39]
HAN Z Q, LI A Y, PEI L L, et al. Milk replacer supplementation ameliorates growth performance and rumen microbiota of early-weaning Yimeng black goats[J]. Frontiers in Veterinary Science, 2020, 7:572064.

DOI

[40]
CAMPANARO S, TREU L, et al. New insights from the biogas microbiome by comprehensive genome-resolved metagenomics of nearly 1600 species originating from multiple anaerobic digesters[J]. Biotechnology for Biofuels, 2020, 13:25.

DOI PMID

[41]
BETANCUR-MURILLO C L, AGUILAR-MARÍN S B, JOVEL J. Prevotella:a key player in ruminal metabolism[J]. Microorganisms, 2022, 11(1):1.

DOI

[42]
PARKER B J, WEARSCH P A, VELOO A C M, et al. The genus alistipes:gut bacteria with emerging implications to inflammation,cancer,and mental health[J]. Frontiers in Immunology, 2020, 11:906.

DOI

[43]
LUO T, ZHU J J, LI K R, et al. Crosstalk between innate immunity and rumen-fecal microbiota under the cold stress in goats[J]. Frontiers in Immunology, 2024, 15:1363664.

DOI

[44]
LA REAU A J, SUEN G. The ruminococci:key symbionts of the gut ecosystem[J]. Journal of Microbiology, 2018, 56(3):199-208.

DOI

[45]
SUN H Y, YANG Z Y, SHI G Y, et al. Methane production from acetate,formate and H2/CO2 under high ammonia level:modified ADM1 simulation and microbial characterization[J]. Science of the Total Environment, 2021, 783:147581.

DOI

[46]
FAN Q S, WANAPAT M, YAN T H, et al. Altitude influences microbial diversity and herbage fermentation in the rumen of yaks[J]. BMC Microbiology, 2020, 20(1):370.

DOI PMID

[47]
PAZ E A, CHUA E G, HASSAN S U, et al. Bacterial communities in the gastrointestinal tract segments of helminth-resistant and helminth-susceptible sheep[J]. Animal Microbiome, 2022, 4(1):23.

DOI PMID

[48]
ZHAO Y C, YU S Q, ZHAO H Y, et al. Integrated multi-omics analysis reveals the positive leverage of citrus flavonoids on hindgut microbiota and host homeostasis by modulating sphingolipid metabolism in mid-lactation dairy cows consuming a high-starch diet[J]. Microbiome, 2023, 11(1):236.

DOI PMID

[49]
LI S J, JIANG Z, JI G D. Effect of sulfur sources on the competition between denitrification and DNRA[J]. Environmental Pollution, 2022, 305:119322.

DOI

[50]
LOMBARD V, GOLACONDA RAMULU H, DRULA E, et al. The carbohydrate-active enzymes database (CAZy) in 2013[J]. Nucleic Acids Research,2014,42:D490-D495.

[51]
HOBBS E E M, GLOSTER T M, PRITCHARD L. Cazy-webscraper:local compilation and interrogation of comprehensive CAZyme datasets[J]. Microbial Genomics, 2023, 9(8):mgen001086.

[52]
CANTAREL B L, COUTINHO P M, RANCUREL C, et al. The carbohydrate-active enzymes database (CAZy): an expert resource for glycogenomics[J]. Nucleic Acids Research, 2009, 37(Database issue):D233-D238.

[53]
姜碧薇. 酶菌混合处理粗饲料对其纤维结构及滩羊生长性能和瘤胃菌群的影响[D]. 博士学位论文. 银川: 宁夏大学, 2021.

JIANG B W. Effects of enzyme bacteria mixed treatment of roughage on fiber structure,growth performance and rumen microflora of Tan sheep[D]. Ph.D.Thesis. Yinchuan: Ningxia University, 2021. (in Chinese)

Outlines

/