RESEARCH PAPER

Effects of Dietary Fat Soluble Extract of Angelica sinensis on Growth Performance, Body Composition, Nutrient Metabolism, and Antioxidant Capacity of Cyprinus carpio var. Jian

  • WANG Miaomiao , 1 ,
  • LIU Haijing 1 ,
  • LI Jiang 1 ,
  • HUANG Xiaolan 1 ,
  • YANG Qihui 2 ,
  • XU Jing 1 ,
  • CHEN Gangfu 1 ,
  • LI Huatao , 1, * ,
  • HE Yang , 1, *
Expand
  • 1 Fishes Conservation and Utilization in the Upper Reaches of the Yangtze River Key Laboratory of Sichuan Province, Collage of Fisheries, Neijiang Normal University, Neijiang 641100, China
  • 2 College of Fisheries, Guangdong Ocean University, Zhanjiang 524088, China
* LI Huatao, professor, E-mail: ;
HE Yang, associate professor, E-mail:

Received date: 2025-06-02

  Online published: 2025-12-13

Abstract

This experiment was conducted to investigate the effects of the fat soluble extract of Angelica sinensis (FSE) on the growth performance, body composition, nutrient metabolism, and antioxidant capacity of Jian carp (Cyprinus carpio var. Jian), aiming to provide a basis for developing FSE as a lipid-lowering feed additive for fish. A total of 420 juvenile Jian carp with an average body weight of (12.89±0.05) g were randomly divided into 7 groups, with 3 replicates in each group and 20 carp in each replicate. The blank group was fed a basal diet, while the other 6 groups were fed experimental diets supplemented with FSE at 0.2%, 0.4%, 0.8%, 1.2%, 1.6%, and 2.0%, respectively. The feeding trial lasted for 15 days. The results showed that compared with the blank group, when dietary FSE supplementation level was 0.2% to 2.0%, weight gain, specific growth rate, feed efficiency, lipid productive value, malondialdehyde (MDA) content in the hepatopancreas, plasma glutamate-pyruvate transaminase (GPT) activity and high-density lipoprotein cholesterol content significantly decreased (P<0.05); the body protein content, anti-superoxide anion (ASA) activity in the hepatopancreas, creatine kinase activity in muscle, glutamate-oxaloacetate transaminase (GOT) and superoxide dismutase (SOD) activities in the gills, as well as Na+/K+-ATPase (NKA) and lactate dehydrogenase (LDH) activities in erythrocytes were significantly increased (P<0.05). Meanwhile, dietary FSE at the supplementation levels of 0.8% to 1.6%, 0.4% to 2.0%, 0.4% to 2.0%, 1.6%, 0.8% to 2.0%, 0.8% to 2.0%, and 1.2% to 2.0% significantly reduced the condition factor (CF), body lipid content, ammonia excretion rate (AER), plasma GOT activity, total amino acid content, hydrogen peroxide (H2O2) content in muscle, and MDA content in the gills (P<0.05), respectively. Furthermore, dietary FSE at supplementation levels of 0.8% to 2.0%, 0.4% to 2.0%, 0.4% to 2.0%, 0.2% to 0.8%, 0.8% to 2.0%, 1.6%, 0.4% to 0.8%, 1.6% to 2.0%, 0.8% to 2.0%, 0.2% to 1.2%, 0.4% to 0.8%, 0.4% to 2.0%, 0.8% to 2.0%, 1.6% to 2.0%, 0.4% to 1.2%, and 1.6% to 2.0% significantly increased protein productive value (PPV), oxygen consumption rate (OCR), O∶N ratio, plasma low-density lipoprotein cholesterol content, GOT, LDH and SOD activities in the hepatopancreas, GPT, LDH, and catalase activities in muscle, NKA and anti-hydroxyl radical (AHR) activities in the gills, as well as GOT, GPT and glutathione peroxidase (GPx) activities and glutathione (GSH) content in erythrocytes (P<0.05), respectively. These findings indicate that under the experimental conditions, dietary FSE can reduce the body lipid content and increase body protein content by enhancing the catabolism of lipids and carbohydrates, ATP consumption, and protein synthesis. Concurrently, it improves the Jian carp’s antioxidant capacity by increasing the activities of enzymatic antioxidants and the contents of non-enzymatic antioxidants, thereby inhibiting the generation of reactive oxygen species and lipid oxidation in tissues and organs. Broken-line regression analysis based on CF and PPV indicated that the appropriate dietary FSE supplementation levels are 1.16% and 1.24%, respectively. In conclusion, FSE can reduce body fat deposition and enhance protein deposition in Jian carp by improving nutrient metabolism and antioxidant capacity. Keywords: fat soluble extract of Angelica sinensis; Jian carp; growth performance; body composition; metabolism; antioxidant

Cite this article

WANG Miaomiao , LIU Haijing , LI Jiang , HUANG Xiaolan , YANG Qihui , XU Jing , CHEN Gangfu , LI Huatao , HE Yang . Effects of Dietary Fat Soluble Extract of Angelica sinensis on Growth Performance, Body Composition, Nutrient Metabolism, and Antioxidant Capacity of Cyprinus carpio var. Jian[J]. Chinese Journal of Animal Nutrition, 2025 , 37(12) : 8551 -8564 . DOI: 10.12418/CJAN2025.696

在集约化水产养殖中,多种淡水与海水鱼类普遍出现了脂肪过度沉积的现象,这已成为困扰我国养殖者的主要难题之一,其中,淡水鱼类包括鲤、鲫、罗非鱼、鲟、虹鳟等,海水鱼类包括鲈、大黄鱼、大菱鲆、黑鲷、真鲷、牙鲆等[1]。目前,“瘦身鱼”养殖是解决鱼体过肥的有效途径,即选择体格肥大的成鱼,先将其放养于水质较好的池塘里休养一段时间,然后将其置于清澈的流水中进行瘦身(约15 d),从而达到降低鱼体脂肪含量和改善肉质的目的[2]。在“瘦身鱼”养殖中,全程不投喂饲料,鱼体仅靠自身的营养物质维持生理代谢与机能活动[3]。据报道,饥饿降低了鱼体的脂肪含量,但也降低了鱼的体重(BW),导致了蛋白质的流失[4]。蛋白质是鱼类的主要能量来源,当饲料投喂不足时,鱼体蛋白质将作为能源物质被消耗掉[5]。因此,开发既具有降脂功能又不降低鱼体重的饲料添加剂具有重要意义。
当归(Angelica sinensis)为伞形科多年生草本植物,是国内大宗中药材[6]。我国现行《饲料原料目录》规定了当归或其特定部位经干燥、粉碎或粗提后获得的产品属于饲料原料。已有报道显示,当归具有抑制肥胖小鼠体重增加的作用[7]。当归的主要活性成分有藁本内酯、阿魏酸和多糖等物质[8],其中藁本内酯是当归的主要亲脂性成分[9]。已有研究发现,藁本内酯可降低糖尿病大鼠的脂质积累[10]。因此,当归脂溶性提取物(FSE)可能具有降低鱼类脂肪沉积的作用。然而,到目前为止,有关FSE对鱼生长性能、体成分以及营养物质代谢的影响未见报道。
当归作为天然植物饲料原料,与常规饲料原料相比其产量较低,并不适宜长期大量投喂[11]。已有报道显示,短期(14 d)口服中草药粉或水煎剂显著改善了鲟和镜鲤生长或免疫功能[12-14]。因此,本试验通过在饲料中添加不同水平的FSE,研究短期(15 d)投喂FSE对建鲤(Cyprinus carpio var. Jian)生长性能、体成分、营养物质代谢及抗氧化能力的影响,为开发FSE作为具有降脂功能的鱼饲料添加剂提供依据。

1 材料与方法

1.1 试验材料

1.1.1 FSE的制备

整根全当归购自于甘肃省渭源县会川世鸿中药材农民专业合作社。首先,根据药典的描述对购入的当归进行鉴别并编号,保存于植物标本室。然后,参照文献[15]描述的方法对当归进行提取,简要步骤如下:先将当归置于50 ℃烘箱中烘干,然后使用中药研磨机(荣浩RHP-2000A,浙江荣浩股份有限公司)将其粉碎并过40目筛。称取当归粉1.0 kg,加入8倍质量的石油醚(分析纯),用搅拌器[大龙OS40S,大龙兴创实验仪器(北京)股份公司]在室温下对其进行搅拌提取。过滤后,使用旋转蒸发仪(亚荣RE-52CS,上海亚荣生化仪器厂)对提取液进行减压蒸馏,直至恒重以去除溶剂,获得当归的石油醚提取物(PEE)。然后,将过滤并挥发干后的原料残渣按照以上方法使用8倍质量的乙酸乙酯(分析纯)进行提取,经过滤和减压蒸馏后,获得当归的乙酸乙酯提取物(EAE)。每种溶剂在相同条件下均进行3次重复提取,每次提取均持续8 h以上。将2种提取物分别置于密封瓶中,-80 ℃保存。使用前,将PEE和EAE合并,获得FSE。

1.1.2 FSE活性成分的测定

参照文献[16]报道的方法,通过高效液相色谱(HPLC)法分别测定PEE和EAE的藁本内酯、阿魏酸和儿茶素含量。

1.2 试验饲料的配制

基础饲料以鱼粉、葵花籽粕和菜籽粕为蛋白质源,玉米油为脂肪源,参照NRC(1993)[17]普通鲤的营养需要量配制,其组成及营养水平见表1。参照Li等[18]描述的方法,分别以0.2%、0.4%、0.8%、1.2%、1.6%和2.0%的FSE替代基础饲料中等量的面粉,配制成6种试验饲料。将饲料制成1.5 mm的颗粒后放入密封袋,置于-20 ℃保存直至使用。饲料中干物质含量通过称量其在105 ℃下干燥至恒重后的重量获得(参照GB/T 6435—2014);粗蛋白质含量通过凯氏定氮法获得(参照GB/T 6432—2018);粗脂肪含量采用以石油醚为溶剂的索氏提取法获得(参照GB/T 6433—2006);粗灰分含量根据饲料在马弗炉中550 ℃下灼烧后的重量损失计算获得(参照GB/T 6438—2007)。
表1 基础饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
鱼粉Fish meal 33.00
葵花籽粕Sunflower seed meal 11.00
菜籽粕Rapeseed meal 11.00
面粉Wheat flour 39.00
DL-蛋氨酸DL-Met 0.70
赖氨酸Lys 0.50
苏氨酸Thr 0.80
玉米油Corn oil 2.00
维生素预混料Vitamin premix1) 1.00
矿物质预混料Mineral premix2) 1.00
合计Total 100.00
营养水平Nutrient levels3)
总能GE/(MJ/kg) 17.33
干物质DM 93.33
粗蛋白质CP 34.67
粗脂肪EE 5.78
粗灰分Ash 5.97

1)每千克维生素预混料含有 One kg of vitamin premix contained the following:VA 0.80 g,VD3 0.48 g,DL-α-生育酚乙酸酯DL-α-tocopherol acetate 20.00 g,VK3 0.43 g,VB1 0.11 g,核黄素 riboflavine 0.63 g,盐酸吡哆醇 pyridoxine HCl 0.92 g,VB12 0.10 g,抗坏血酸乙酸酯 ascorhyl acetate 7.16 g,D-泛酸钙 D-calcium pantothenate 2.73 g,烟酸 niacin 2.82 g,D-生物素 D-biotin (2%) 5.00 g,内消旋肌醇 meso-inositol 52.33 g,叶酸 folic acid 0.52 g。

2)每千克矿物质预混料含有 One kg of mineral premix contained the following:FeSO4·7H2O (20% Fe) 69.70 g,CuSO4·5H2O (25% Cu) 1.20 g,ZnSO4·7H2O (23% Zn) 21.64 g,MnSO4·H2O (32% Mn) 4.09 g,Na2SeO3·5H2O (1% Se) 2.50 g,KI (4% I) 2.90 g,CaCO3 897.98 g。

3)营养水平均为实测值。Nutrient levels were all measured values.

1.3 动物试验

1.3.1 试验设计与饲养管理

本试验经过内江师范学院实验动物中心批准,伦理批准编号为JM2021-18。
从四川省内江市东兴区永安镇购得建鲤鱼苗后,参照文献[19]描述的方法,先将鱼苗在实验室环境下驯化。2周后,从驯化系统中选择体重为(12.89±0.05) g的建鲤鱼苗420尾,随机分为7个组,每组3个重复,每个重复20尾鱼。每个重复的鱼均放养于1个相同大小的长方体鱼箱(长×宽×高=55.0 cm×32.0 cm×40.0 cm)中,共计21个。空白组投喂基础饲料,其余6组为0.2%、0.4%、0.8%、1.2%、1.6%和2.0% FSE组,分别投喂添加0.2%、0.4%、0.8%、1.2%、1.6%和2.0%FSE的试验饲料。每天按鱼初重(IBW)的1.89%定量投喂,用以维持鱼的体重不降低,因每次投喂后无剩料,其投喂量即为摄食量(FI)。每天投喂4次,投喂持续15 d。

1.3.2 生长性能的测定

投喂结束后,对每个重复的鱼进行计数和称重,利用终末鱼数、FI、IBW与末重(FBW),计算成活率(SR)、增重(WG)、特定生长率(SGR)和饲料效率(FE);禁食24 h后,每个重复随机选取10尾鱼,先用氨基甲酸乙酯麻醉,然后称量体重和测量体长,用于鱼体肥满度(CF)的计算。计算公式如下:
SR(%)=(终末鱼数/初始鱼数)×100;
WG(g/尾)=FBW-IBW;
SGR(%/d)=[(lnFBW-lnIBW)/试验天数]×100;
FE(%)=[(FBW-IBW)/FI]×100;
CF(g/cm3)=(鱼体重/鱼体长3)×100。

1.3.3 体成分的测定

在投喂开始时,从驯化系统中随机取30尾鱼,分为3个重复,每个重复10尾鱼(记录为初鱼),去除内脏后,用于初鱼的体成分的测定;在投喂结束后,从每个重复随机取5尾鱼(记录为末鱼),去除内脏后,用于末鱼的体成分的测定。先将鱼体在105 ℃干燥至恒重,根据其失重计算含水量;然后将干燥的鱼体粉碎,用多功能近红外分析仪(FOSS NIRS DA1650, FOSS NIR Systems Inc.,Denmark)测定鱼体粗蛋白质含量(BPC)、鱼体粗脂肪含量(BLC)和鱼体粗灰分含量(BAC)[20-21],并按以下公式计算粗蛋白质沉积率(PPV)、粗脂肪沉积率(LPV)和粗灰分沉积率(APV)。
PPV(%)=[(FBW×末鱼BPC-IBW×初鱼BPC)/(FI×0.346 7)]×100;
LPV(%)=[(FBW×末鱼BLC-IBW×初鱼BLC)/(FI×0.057 8)]×100;
APV(%)=[(FBW×末鱼BAC-IBW×初鱼BAC)/(FI×0.059 7)]×100。

1.3.4 氧氮代谢试验

投喂结束后,禁食24 h,每个重复随机取5尾鱼称重,参照文献[22]描述的方法,测定鱼体氧消耗率[OCR,mg/(g·h)]、氨释放率[AER,mg/(g·h)]以及氧氮比(O∶N)。每组都进行3次独立重复试验,以确保数据的可靠性。具体如下:1)将120.0 L自来水持续充氧爆气24 h,使其溶解氧(DO)达到饱和,试验前用便携式溶解氧测定仪(雷磁JPBJ-608型,上海仪电科学仪器股份有限公司)测定水体的DO含量,记录为初溶氧(IDO,mg/L);采集水样1.0 mL保存,用试剂盒(A086-1-1,南京建成生物工程研究所)测定其氨含量,记录为初溶氨(IDA,μmol/L)。2)将60倍鱼体重的饱和溶氧水体积(WV,L)移至一短颈圆底透明塑料瓶(底径16.0 cm,高35.0 cm,口径4.5 cm,容量4.5 L)中并迅速放入已称重的5尾鱼;排空瓶内空气后,立即封闭瓶口,并计时0.5 h。3)计时结束后,立即测定瓶中水的DO含量,记录为末溶氧(FDO,mg/L);采集瓶内水样1.0 mL保存,用以测定水中的氨含量,记录为末溶氨(FDA,μmol/L)。在整个试验过程中,确保FDO不低于5.0 mg/L,以防止鱼体受到生理应激的影响。OCR、AER和O∶N的计算公式如下:
OCR=(IDO-FDO)×WV/(0.50×体重);
AER=(FDA-IDA)×WV/(0.50×体重);
O∶N=(14×OCR)/(16×AER)。

1.3.5 生化指标的测定

每个重复麻醉后测完CF的10尾鱼,置于冰上,用肝素化注射器进行尾静脉采血,直至死亡。将血液1 000×g(4 ℃)离心5 min后,分离血浆和红细胞。然后,掰开鳃盖,取出鳃瓣;再剖开鱼体腹腔,取出整体内脏,分离出肝胰脏;最后,剪取鱼体背部约1.0 cm2的肌肉1块。各样品分别保存于-80 ℃冰箱。在生化指标测定前,将红细胞解冻后,加入9倍体积预冷双蒸水摇匀,经3 000×g(4 ℃)离心20 min后,取上清液备用;将鳃、肝胰脏或肌肉在冰冻状态下剪碎,加入9倍体积预冷生理盐水,然后用手持式高速匀浆机(FJ200-SH,上海标本模型厂)在21 000 r/min下匀浆3×10 s,最后3 000×g(4 ℃)离心20 min,取上清液备用。
血浆检测指标为谷草转氨酶(GOT)和谷丙转氨酶(GPT)活性以及总蛋白(TP)、总氨基酸(TAA)、低密度脂蛋白胆固醇(LDL-C)和高密度脂蛋白胆固醇(HDL-C)含量。红细胞检测指标为Na+/K+-ATP酶(NKA)、GOT、GPT、乳酸脱氢酶(LDH)和谷胱甘肽过氧化物酶(GPx)活性以及血红蛋白(Hb)和还原型谷胱甘肽(GSH)含量。鳃检测指标为NKA、GOT、抗羟自由基(AHR)和超氧化物歧化酶(SOD)活性以及组织蛋白(prot)和丙二醛(MDA)含量。肝胰脏测定指标为GOT、LDH、抗超氧阴离子(ASA)和SOD活性以及prot和MDA含量。肌肉测定指标为GPT、LDH、肌酸激酶(CK)和过氧化氢酶(CAT)活性以及prot和过氧化氢(H2O2)含量。
NKA(A070-2-2)、GOT(C010-3-1)、GPT(C009-3-1)、LDH(A020-1-2)、CK(A032-1-1)、ASA(A052-1-1)、AHR(A018-1-1)、SOD(A001-1-2)、CAT(A007-1-1)和GPx(A005-1-2)活性以及Hb(A102-1-1)、prot(A045-2-2)、H2O2(A064-1-1)、MDA(A003-1-2)、GSH(A006-1-1)、LDL-C(A113-1-1)、HDL-C(A112-1-1)、TP(A045-2-3)和TAA(A026-1-1)含量的测定采用试剂盒法,试剂盒均购自南京建成生物工程研究所,详细操作参照试剂盒说明书的描述。

1.4 数据统计与分析

采用SPSS 26.0软件对试验数据进行单因素方差分析(one-way ANOVA),并用Duncan氏法进行多重比较。试验数据以平均值±标准差(SD)表示,P<0.05表示差异显著。

2 结果

2.1 FSE活性成分含量

经检测,如表2所示,PEE中含藁本内酯26.694%,阿魏酸0.004%,儿茶素0.002%;EAE中含藁本内酯4.604%,阿魏酸0.561%,儿茶素未被检出。
表2 当归石油醚提取物和乙酸乙酯提取物的活性成分含量

Table 2 Contents of active ingredients in PEE and EAE of Angelica sinensis %

项目
Items
当归脂溶性提取物Fat soluble extract of Angelica sinensis
PEE EAE
藁本内酯Ligustilide 26.694 4.604
阿魏酸Ferulic acid 0.004 0.561
儿茶素Catechin 0.002

表中指标重复测定3次,结果相同。

The indexes in the table had been measured three times with the same results.

2.2 FSE对建鲤生长性能的影响

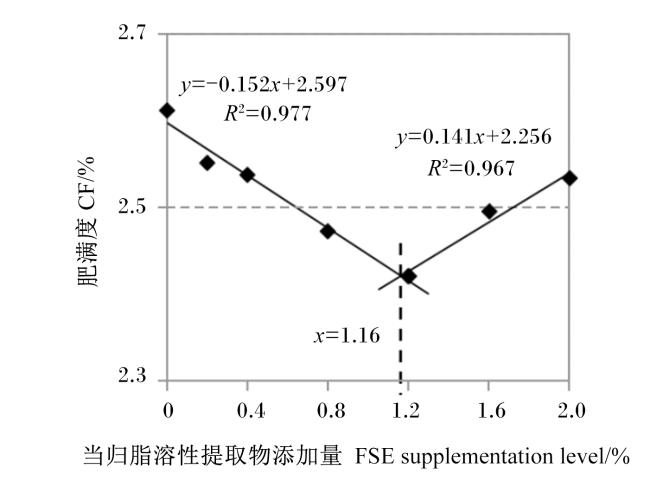
表3可知,与空白组相比,饲料中添加不同水平FSE后建鲤的FBW、WG、SGR和FE都显著降低(P<0.05),并随着FSE添加量提高而逐渐下降;随着饲料中FSE添加量提高,CF呈现先降低后升高的趋势。饲料中FSE添加量为0.8%~1.6%时,CF显著低于空白组(P<0.05),FSE添加量为1.2%时CF达到最低。基于建鲤CF的折线回归分析(图1),得到建鲤饲料中FSE的适宜添加量为1.16%。
表3 FSE对建鲤生长性能的影响

Table 3 Effects of FSE on growth performance of Jian carp

组别
Groups
初重
IBW/
(g/尾)
末重
FBW/
(g/尾)
增重
WG/
(g/尾)
特定生长率
SGR/(%/d)
摄食量
FI/(g/尾)
饲料效率
FE/%
肥满度
CF/
(g/cm3)
成活率
SR/%
空白Blank 12.91±0.04 15.07±0.17f 2.16±0.16f 1.03±0.07f 3.69±0.00 58.45±4.38f 2.61±0.12c 100.00±0.00
0.2% FSE 12.92±0.04 14.48±0.10e 1.56±0.09e 0.76±0.04e 3.69±0.00 42.19±2.37e 2.55±0.08bc 100.00±0.00
0.4% FSE 12.89±0.01 14.20±0.09d 1.31±0.10d 0.65±0.05d 3.69±0.00 35.50±2.61d 2.54±0.14bc 100.00±0.00
0.8% FSE 12.91±0.04 14.00±0.06c 1.09±0.07c 0.54±0.03c 3.69±0.00 29.63±1.92c 2.47±0.11ab 100.00±0.00
1.2% FSE 12.89±0.05 13.79±0.12b 0.90±0.06b 0.45±0.03b 3.69±0.00 24.30±1.74b 2.42±0.12a 100.00±0.00
1.6% FSE 12.88±0.03 13.42±0.06a 0.54±0.04a 0.27±0.02a 3.69±0.00 14.63±1.08a 2.49±0.10ab 100.00±0.00
2.0% FSE 12.89±0.04 13.29±0.02a 0.40±0.04a 0.21±0.02a 3.69±0.00 10.93±1.03a 2.53±0.09bc 100.00±0.00

同列数据肩标不同字母表示差异显著(P<0.05)。下表同。

Values in the same column with different letter superscripts were significantly different (P<0.05). The same as below.

图1 饲料中FSE添加量与建鲤肥满度的折线回归分析

Fig.1 Broken-line regression analysis of dietary FSE supplementation level and CF for Jian carp

2.3 FSE对建鲤体成分和营养物质沉积率的影响

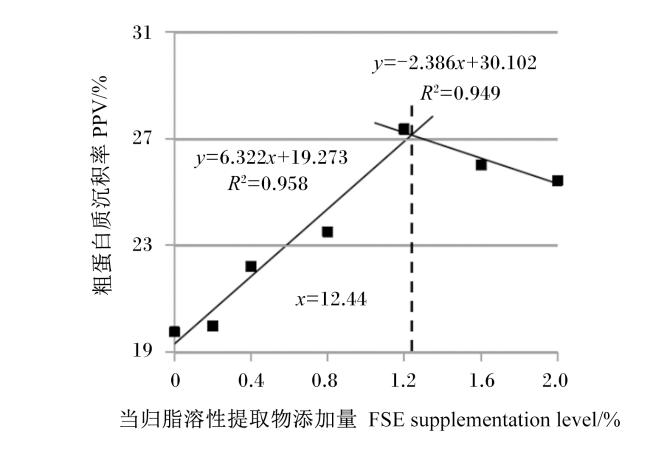
表4可知,与空白组相比,建鲤BPC、BAC和PPV随着FSE添加量提高而逐渐升高,当饲料中FSE添加量分别为0.2%~2.0%、0.2%~2.0%和0.8%~2.0%时,三者显著提高(P<0.05),且三者于FSE添加量分别提高到1.6%、1.6%和1.2%时达到最高,进一步提高FSE添加量三者无显著变化(P>0.05)。与空白组相比,BLC、LPV和APV随着FSE添加量提高而逐渐下降,当饲料中FSE添加量分别为0.4%~2.0%、0.2%~2.0%和0.2%~2.0%时,三者显著降低(P<0.05),且三者于FSE添加量分别提高到1.6%、2.0%和2.0%时达到最低。基于PPV的折线回归分析(图2),得到建鲤饲料中FSE的适宜添加量为1.24%。
表4 FSE对建鲤体成分和营养物质沉积率的影响

Table 4 Effects of FSE on body composition and nutrient productive values in carcass of Jian carp %

组别
Groups
水分含量
Moisture
content
鱼体粗蛋
白质含量
BPC
鱼体粗
脂肪含量
BLC
鱼体
粗灰分含量
BAC
粗蛋白质
沉积率
PPV
粗脂肪
沉积率
LPV
粗灰分
沉积率
APV
空白Blank 76.16±1.16 14.09±0.06a 5.14±0.08e 3.20±0.06a 19.75±1.05a 65.70±3.64g 27.52±2.84e
0.2% FSE 75.85±1.08 14.70±0.11b 5.10±0.04de 3.28±0.05b 19.97±0.49a 48.56±2.70f 24.21±1.89d
0.4% FSE 75.69±1.02 15.15±0.19c 5.04±0.05cd 3.32±0.03bc 22.21±1.67ab 38.90±2.13e 23.03±2.35cd
0.8% FSE 75.50±1.10 15.51±0.22d 5.01±0.04bc 3.33±0.03bc 23.51±1.87bc 31.76±2.84d 20.57±1.00bc
1.2% FSE 75.27±0.67 16.09±0.20e 4.96±0.01b 3.37±0.03cd 27.37±2.33d 23.57±2.34c 20.35±1.35bc
1.6% FSE 75.15±0.64 16.39±0.13f 4.88±0.01a 3.42±0.01d 26.03±1.87cd 10.83±1.00b 17.76±0.83ab
2.0% FSE 75.20±1.06 16.50±0.13f 4.84±0.02a 3.42±0.02d 25.46±1.14cd 5.14±0.32a 15.89±1.01a
图2 饲料中FSE添加量与建鲤鱼体粗蛋白质沉积率的折线回归分析

Fig.2 Broken-line regression analysis of dietary FSE supplementation level and body PPV of Jian carp

2.4 FSE对建鲤氧氮代谢的影响

表5可知,随着饲料中FSE添加量的提高,OCR和O∶N逐渐升高,AER逐渐下降。与空白组相比,0.4% FSE组的建鲤OCR和O∶N显著升高(P<0.05),而AER则显著下降(P<0.05);进一步提高FSE添加量,OCR不再显著升高(P>0.05),AER和O∶N分别在FSE添加量为1.2%时达到最低和最高,而后不再有显著变化(P>0.05)。
表5 FSE对建鲤氧氮代谢的影响

Table 5 Effects of FSE on oxygen and nitrogen metabolism of Jian carp

组别
Groups
体重
BW/
(g/尾)
饱和溶氧
水体积
WV/(L/瓶)
末溶氧
FDO/
(mg/L)
末溶氨
FDA/
(μmol/L)
氧消耗率
OCR/
[mg/(g·h)]
氨释放率
AER/
[mg/(g·h)]
氧氮比
O∶N
空白Blank 14.24±0.32 4.27±0.10 5.79±0.12b 91.00±2.23c 0.273±0.014a 0.050±0.005c 4.78±0.38a
0.2% FSE 14.18±0.29 4.25±0.09 5.62±0.12b 89.68±2.49c 0.292±0.013a 0.047±0.005c 5.42±0.42a
0.4% FSE 14.19±0.26 4.26±0.08 5.41±0.11a 85.94±1.98b 0.318±0.014b 0.040±0.004b 7.01±0.43b
0.8% FSE 14.14±0.27 4.24±0.08 5.39±0.13a 86.10±2.23b 0.321±0.015b 0.040±0.005b 7.04±0.66b
1.2% FSE 14.11±0.28 4.23±0.07 5.31±0.08a 82.91±1.05ab 0.330±0.009b 0.034±0.002ab 8.61±0.78c
1.6% FSE 14.06±0.25 4.22±0.08 5.34±0.10a 83.07±1.07ab 0.326±0.012b 0.034±0.002ab 8.45±0.84c
2.0% FSE 14.07±0.35 4.22±0.10 5.36±0.08a 82.37±1.46a 0.324±0.009b 0.033±0.003a 8.76±0.92c

初溶氧IDO:(8.06±0.23) mg/L;初溶氨IDA:(66.42±3.23) μmol/L。

2.5 FSE对建鲤生化指标的影响

2.5.1 血浆生化指标

表6可知,随着饲料中FSE添加量的提高,血浆GOT活性呈先下降后升高的趋势,且1.6% FSE组GOT活性显著低于空白组(P<0.05),但2.0% FSE组GOT活性突然升高,与空白组差异不显著(P>0.05)。随着饲料中FSE添加量的提高,血浆GPT活性以及TAA和HDL-C含量逐渐下降,三者在FSE添加量分别为1.2%、2.0%和2.0%时最低。血浆TP和LDL-C含量随FSE添加量的提高呈先升高后下降的趋势,二者均在0.4% FSE组最高,并显著高于空白组(P<0.05),而后随之降低。
表6 FSE对建鲤血浆生化指标的影响

Table 6 Effects of FSE on biochemical indicators in plasma of Jian carp

组别
Groups
谷草转氨酶
GOT/(U/L)
谷丙转氨酶
GPT/(U/L)
总蛋白
TP/(g/L)
总氨基酸
TAA/(mmol/L)
低密度脂
蛋白胆固醇
LDL-C/
(mmol/L)
高密度脂
蛋白胆固醇
HDL-C/
(mmol/L)
空白Blank 57.65±9.79bc 127.04±24.99c 24.58±0.60b 38.92±4.74d 2.34±0.10a 2.58±0.13c
0.2% FSE 57.87±10.38bc 94.93±18.73b 23.04±1.11b 38.21±3.34d 2.63±0.21b 1.32±0.07b
0.4% FSE 58.27±9.26bc 55.82±6.90a 28.53±1.60c 35.44±3.17d 3.12±0.18c 1.30±0.03b
0.8% FSE 51.80±8.55ab 47.01±1.30a 22.55±0.96b 26.17±4.61c 2.97±0.08c 1.23±0.18b
1.2% FSE 43.82±7.89ab 36.53±6.02a 23.99±2.69b 23.29±3.33bc 2.41±0.15ab 1.22±0.06b
1.6% FSE 39.53±7.67a 40.11±7.78a 15.10±2.85a 19.29±2.06ab 2.37±0.12a 1.26±0.11b
2.0% FSE 69.87±10.83c 39.61±7.44a 14.45±2.50a 16.02±1.79a 2.19±0.19a 0.97±0.04a

2.5.2 肝胰脏生化指标

表7可知,建鲤肝胰脏GOT、LDH、ASA和SOD活性随FSE添加量的提高呈先升高后降低的趋势,且在FSE添加量分别为0.8%~2.0%、1.6%、0.2%~2.0%和0.4%~0.8%时显著高于空白组(P<0.05),在FSE添加量分别为1.2%、1.6%、0.8%和0.4%时达到最高。与空白组相比,随着饲料中FSE添加量的提高,肝胰脏MDA含量逐渐下降。
表7 FSE对建鲤肝胰脏生化指标的影响

Table 7 Effects of FSE on biochemical indicators in hepatopancreas of Jian carp

组别
Groups
谷草转氨酶
GOT/
(U/g prot)
乳酸脱氢酶
LDH/
(U/g prot)
抗超氧阴离子
ASA/(U/g prot)
丙二醛
MDA/
(nmol/mg prot)
超氧化
物歧化酶
SOD/(U/mg prot)
空白Blank 27.01±4.86a 104.33±9.93ab 33.07±1.50a 15.67±2.30d 87.14±5.23a
0.2% FSE 28.50±5.32ab 109.20±21.93abc 54.88±6.50b 11.88±1.40c 89.18±7.40a
0.4% FSE 32.86±6.12abc 121.12±15.74bc 68.39±3.94c 7.29±0.58b 103.25±2.46c
0.8% FSE 34.63±1.84bc 129.11±12.18bc 82.32±5.57d 5.29±0.76a 101.25±3.49bc
1.2% FSE 38.80±2.23c 123.28±19.30bc 66.89±3.20c 5.05±1.26a 94.99±3.89ab
1.6% FSE 34.43±2.16bc 137.13±24.40c 62.79±5.73c 4.30±0.45a 92.66±2.68a
2.0% FSE 34.70±2.86bc 96.90±20.87a 62.15±6.61bc 3.86±0.51a 92.49±8.32a

2.5.3 肌肉生化指标

表8可知,随着饲料中FSE添加量的提高,建鲤肌肉GPT、LDH和CK活性逐渐升高,且三者在FSE添加量分别为1.6%~2.0%、0.8%~2.0%和0.2%~2.0%时显著高于空白组(P<0.05)。随FSE添加量的提高,肌肉H2O2含量呈先下降后升高的趋势,CAT活性呈先升高后降低的趋势,并且二者在FSE添加量分别为0.8%~2.0%和0.2%~1.2%时与空白组有显著差异(P<0.05),且分别在0.8% FSE组达到最低值和最高值。
表8 FSE对建鲤肌肉生化指标的影响

Table 8 Effects of FSE on biochemical indicators in muscle of Jian carp

组别
Groups
谷丙转氨酶
GPT/
(U/g prot)
乳酸脱氢酶
LDH/
(U/g prot)
肌酸激酶
CK/(U/mg prot)
过氧化氢
H2O2/
(mmol/g prot)
过氧化氢酶
CAT/(U/mg prot)
空白Blank 11.83±1.39a 233.25±25.05a 42.24±6.90a 26.69±4.50c 27.10±0.86a
0.2% FSE 12.94±0.22ab 243.92±14.08ab 52.99±9.32b 23.99±3.89bc 29.13±0.79cd
0.4% FSE 12.91±1.73ab 241.81±16.61ab 54.77±6.02b 23.89±2.47bc 29.12±0.78cd
0.8% FSE 13.42±1.57ab 245.55±9.50bc 66.67±7.89c 17.90±3.02a 29.24±0.42d
1.2% FSE 13.34±0.78ab 268.96±17.15c 65.67±2.95c 18.27±3.55a 28.23±0.55bc
1.6% FSE 14.00±1.29bc 263.78±10.38c 68.02±3.97c 19.10±2.56ab 27.54±0.33ab
2.0% FSE 15.52±0.45c 266.33±3.76c 65.67±4.35c 19.66±3.81ab 27.25±0.23a

2.5.4 鳃生化指标

表9可知,随着饲料中FSE添加量的提高,建鲤鳃NKA和SOD活性呈先升高后降低的趋势,并且二者在FSE添加量分别为0.4%、0.8%时达到最高;进一步提高添加量,NKA活性出现下降,且在2.0% FSE组显著低于空白组(P<0.05)。随着FSE添加量的提高,鳃GOT、AHR活性逐渐升高,MDA含量逐渐降低,三者在FSE添加量分别为0.2%~2.0%、0.4%~2.0%和1.2%~2.0%时与空白组有显著差异(P<0.05),且在FSE添加量分别为1.2%、0.8%和1.2%时达到极值,进一步提高添加量三者无显著变化(P>0.05)。
表9 FSE对建鲤鳃生化指标的影响

Table 9 Effects of FSE on biochemical indicators in gills of Jian carp

组别
Groups
Na+/K+-ATP酶
NKA/
(U/mg prot)
谷草转氨酶
GOT/
(U/g prot)
抗羟自由基
AHR/
(U/mg prot)
丙二醛
MDA/
(nmol/mg prot)
超氧化物
歧化酶
SOD/(U/mg prot)
空白Blank 6.98±0.75bc 185.52±12.84a 24.14±3.31a 7.76±0.61b 12.37±2.12a
0.2% FSE 7.84±0.84cd 231.30±38.28b 24.46±2.76a 7.16±0.49ab 14.83±1.48b
0.4% FSE 8.80±0.94d 272.56±14.00b 29.43±3.07b 6.85±1.13ab 16.68±2.26bc
0.8% FSE 8.49±1.00d 273.02±35.20b 34.21±0.78c 6.89±0.79ab 17.78±0.78c
1.2% FSE 7.65±1.45bcd 324.47±26.03c 36.49±2.13c 6.45±0.17a 17.04±0.59bc
1.6% FSE 6.21±0.80ab 354.87±52.88c 37.91±4.06c 6.51±0.91a 16.79±2.32bc
2.0% FSE 5.03±0.62a 350.96±14.60c 35.43±2.80c 6.25±0.83a 16.05±0.95bc

2.5.5 红细胞生化指标

表10可知,随着FSE添加量的提高,建鲤红细胞NKA、GOT和GPT活性以及GSH含量逐渐升高,这些指标在FSE添加量分别为0.2%~2.0%、0.8%~2.0%、1.6%~2.0%和1.6%~2.0%时与空白组有显著差异(P<0.05);红细胞GOT和GPT活性在FSE添加量分别超过0.8%、1.6%后趋于稳定,进一步提高FSE添加量二者无显著变化(P>0.05)。随着饲料中FSE添加量的提高,红细胞LDH和GPx活性呈先升高后降低的趋势,二者在FSE添加量分别为0.4%、0.8%时最高,并且显著高于空白组(P<0.05)。
表10 FSE对建鲤红细胞生化指标的影响

Table 10 Effects of FSE on biochemical indicators in erythrocytes of Jian carp

组别
Groups
Na+/K+-ATP酶
NKA/
(U/mg Hb)
谷草转氨酶
GOT/(U/g Hb)
谷丙转氨酶
GPT/(U/g Hb)
乳酸脱氢酶
LDH/(U/g Hb)
谷胱甘肽过
氧化物酶
GPx/(U/mg Hb)
还原型
谷胱甘肽
GSH/(mg/g Hb)
空白Blank 0.96±0.06a 13.22±1.94a 9.65±1.23a 111.98±7.14a 69.44±4.49ab 5.87±0.99a
0.2% FSE 1.05±0.03b 14.66±2.61ab 10.20±0.56a 192.37±12.47c 79.02±4.42bc 5.88±0.77a
0.4% FSE 1.15±0.06c 16.28±1.08abc 10.87±2.26a 237.82±15.86d 88.94±4.00c 6.58±1.25a
0.8% FSE 1.20±0.03c 18.05±2.66bc 12.01±1.59a 180.16±11.08bc 106.57±6.03d 6.43±0.88a
1.2% FSE 1.29±0.03d 18.03±3.60bc 11.90±1.75a 180.85±20.93bc 88.34±6.48c 6.63±1.40a
1.6% FSE 1.45±0.08e 19.61±2.72c 17.07±1.79b 166.30±16.19b 78.71±4.95bc 11.24±1.53b
2.0% FSE 1.55±0.04f 19.78±2.97c 17.13±1.18b 167.51±12.85b 67.59±11.60a 15.19±1.47c

3 讨论

3.1 FSE的毒性

GOT和GPT作为重要的代谢酶,主要存在于鱼类的肝细胞[23]。当肝细胞出现损伤时,细胞内的GOT和GPT进入到血液中,导致血浆GOT和GPT活性升高[24]。因此,血浆中的GOT和GPT活性能够反映肝脏的损伤程度。本试验中,饲料中添加FSE并持续投喂15 d,建鲤血浆GOT和GPT活性未出现显著升高;在FSE添加量为1.6%时,血浆GOT和GPT活性均显著低于空白组,此结果与Li等[25]报道的关于投喂EAE抑制了敌百虫诱导的鲤血浆GOT和GPT活性的升高的情况一致。在本试验条件下,饲料中短期(≤15 d)低剂量(≤2.0%)添加FSE后,未检测到建鲤发生肝脏损伤。据报道,持续投喂40 d 1.0%的当归粉并未发现黄颡鱼的增重和成活率下降[26]。本课题组前期的研究发现,饲料中添加23%的当归副产物粉或者0.6%的EAE并持续投喂60 d,均未引起鲫或建鲤鱼体WG下降和SR降低[19,27]。因此,长期投喂FSE对鱼类可能并无毒性,但适宜的持续投喂时间还有待进一步研究。

3.2 饲料中添加FSE降低了建鲤BLC,提高了其BPC

增重和体脂含量的降低是减肥有效的标志[28]。本试验中,与空白组相比,饲料中添加FSE后建鲤的FBW、WG、SGR和FE都显著降低;饲料中FSE添加量为0.8%~1.6%时,建鲤的CF显著低于空白组。此结果与Zhong等[7]报道的关于当归抑制了肥胖小鼠体重升高的情况一致。本试验发现,随着FSE添加量提高,建鲤BLC和LPV逐渐下降,BPC和PPV逐渐升高。此结果可能与FSE含有的藁本内酯有关,本次试验使用的PEE和EAE中分别含有高达26.69%和4.60%的藁本内酯,而藁本内酯已被Guo等[10]报道可以减少糖尿病大鼠体内的脂质蓄积。据此推测,FSE通过藁本内酯实现降低脂肪生成和促进蛋白质合成的效果。基于CF和PPV的折线回归分析显示,建鲤饲料中FSE的适宜添加量分别为1.16%和1.24%。

3.3 饲料中添加FSE改善了建鲤的营养物质代谢

3.3.1 饲料中添加FSE改善了建鲤的氧氮代谢

体成分的变化可能与其营养物质代谢密切相关[29]。呼吸和排泄是与动物能量代谢相关的基本生理活动[30]。OCR是鱼类有氧代谢中的关键指标,能够反映生物体内营养物质的氧化供能程度[31]。在本试验中,饲料中添加FSE提高了建鲤的OCR,此结果可能与FSE中的阿魏酸有关,本试验使用的EAE中含有0.56%的阿魏酸,而阿魏酸已被Li等[20]报道能够抑制铜暴露导致的鲤OCR下降。此结果表明,饲料中添加FSE提高了鱼体营养物质的有氧分解代谢。
氨是硬骨鱼蛋白质分解代谢的主要终产物[16]。在本试验中,饲料中添加FSE降低了建鲤的AER,表明建鲤的蛋白质分解代谢受到抑制。O∶N的变化能够反映动物体能量代谢所消耗营养物质比例的改变,该比值的升高反映了机体脂肪和糖类分解供能的比例升高[30]。本试验中,饲料中添加FSE提高了建鲤的O∶N。本次试验结果说明,饲料中添加FSE提高了鱼体脂肪和糖类的氧化供能,降低了其蛋白质的分解供能。

3.3.2 饲料中添加FSE改善了建鲤营养物质代谢相关的生化指标

GPT和GOT是动物体内蛋白质代谢中的关键酶,参与氨基酸的转氨基过程,其活性反映了机体蛋白质合成或分解代谢的情况[32-33]。本试验中,一方面,饲料中添加FSE降低了建鲤的AER;另一方面,饲料中添加FSE提高了建鲤肝胰脏和鳃GOT活性、肌肉GPT活性、红细胞GOT和GPT活性,降低了血浆TAA含量。此结果与Li等[15]报道的关于EAE提高了鲤肝胰脏和肌肉GOT和GPT活性的情况一致。上述结果表明,饲料中添加FSE抑制了鱼体内蛋白质分解代谢,提高了蛋白质的合成代谢,这可能是导致建鲤BPC和PPV升高的原因。
LDH是动物体内糖酵解途径中的关键酶,可催化葡萄糖分解过程中丙酮酸和乳酸的相互转化[34]。在本试验中,饲料中添加FSE提高了建鲤肝胰脏、肌肉和红细胞的LDH活性。此结果与Long等[31]报道的关于当归EAE抑制了铜诱导的鲤红细胞LDH活性降低的情况一致。此结果进一步说明,饲料中添加FSE提高了建鲤体内糖代谢水平,从而能降低糖类向脂肪的转化。
在脂类的运输过程中,脂蛋白作为血液中脂类的载体发挥了重要的作用[35],其中低密度脂蛋白负责将脂质从肝脏输送到其他组织细胞中利用[36];高密度脂蛋白则负责将肝外脂质通过血液运回肝脏[37-38]。当脂蛋白的合成量不足时肝细胞中的脂肪不能及时运出,会造成脂肪在肝脏中积聚,引起肝脏代谢紊乱[35]。本试验中,饲料中添加FSE提高了建鲤血浆LDL-C含量,降低了HDL-C含量,表明饲料中添加FSE有利于建鲤体内肝脏脂肪的运出和利用,从而降低鱼体脂肪的沉积。
肌肉中的CK能催化磷酸肌酸的去磷酸化,在为肌细胞提供ATP的过程中起重要作用[39]。NKA在维持鱼鳃质膜上的离子电化学梯度和红细胞内的离子环境方面发挥了重要的作用[40-41],此过程消耗了细胞内大量的ATP[16]。本试验中,投喂FSE提高了建鲤肌肉CK活性以及鳃和红细胞NKA活性,此结果与Li等[42]报道的关于EAE抑制了敌百虫诱导的建鲤鳃和红细胞NKA活性降低的情况一致。上述结果表明,饲料中添加FSE能提高建鲤体内ATP的消耗。
以上结果表明,饲料中添加FSE能提高建鲤体内糖类和脂肪的氧化分解、蛋白质的合成以及能量的利用,降低鱼体的脂肪沉积,提高其蛋白质沉积。

3.4 饲料中添加FSE改善了建鲤的抗氧化能力

活性氧(ROS)自由基是细胞代谢过程中的正常产物,主要包括超氧阴离子( ${O}_{2}^{-}$·)、H2O2和羟自由基(·OH)[31]。细胞在代谢过程中能持续产生 ${O}_{2}^{-}$·, ${O}_{2}^{-}$·容易发生自氧化转化成H2O2,而H2O2通过在过渡金属离子的催化下或与 ${O}_{2}^{-}$·发生反应最终转化成·OH[43]。·OH是已知的ROS自由基中毒性最强的自由基,它能氧化脂类中的不饱和脂肪酸,产生脂质氧化的终产物MDA[27]。在本试验中,投喂FSE提高了建鲤肝胰脏ASA和鳃AHR活性,降低了肌肉H2O2含量以及肝胰脏和鳃MDA含量。此结果与Li等[25]报道的关于EAE抑制了敌百虫诱导的鲤肝胰脏ASA和AHR活性的降低以及MDA含量的升高的情况一致。上述结果表明,饲料中添加FSE能降低建鲤组织器官ROS的产生和脂质氧化。
水生动物机体具有抗氧化防御系统,能够清除细胞内的ROS和抑制脂质氧化,其关键的酶促抗氧化剂主要有SOD、CAT和GPx[44]。SOD能有效降解 ${O}_{2}^{-}$·,阻止其转化成H2O2;CAT能催化H2O2分解为H2O和O2[45];GPx能降解和清除生物大分子的过氧化物,将其还原成无毒的羟基化合物[46]。在本试验中,饲料中添加FSE提高了建鲤肝胰脏和鳃SOD活性、肌肉CAT活性以及红细胞GPx活性。GSH是生物体内主要的非酶抗氧化剂,能够直接清除细胞内ROS,抑制细胞内大分子的氧化[47]。本试验中,饲料中添加FSE提高了建鲤红细胞GSH含量。此结果与Li等[16]报道的当归乙醚提取物改善了高密度应激鲫的消化器官SOD、CAT和GPx活性以及敌百虫诱导的鲫肌肉GSH含量的情况一致。以上结果说明,FSE能通过提高建鲤组织器官的酶性抗氧化剂活性和非酶抗氧化剂含量来抑制ROS的产生,提高抗氧化能力。

4 结论

在本试验条件下,饲料中短期(≤15 d)低剂量(≤2.0%)添加FSE后,建鲤未发生肝脏损伤;饲料中的FSE能通过提高建鲤脂肪和糖类的分解代谢、ATP的消耗和蛋白质的合成,来实现BLC下降、BPC上升;通过改善体内酶性抗氧化剂的活性和非酶抗氧化剂的含量,抑制组织器官ROS的产生和脂质氧化,提高建鲤的抗氧化能力。基于CF和PPV的折线回归分析显示,建鲤饲料中FSE的适宜添加量分别为1.16%和1.24%。
[1]
牛化欣, 祁飞, 贾磊. 集约化养殖鱼类脂肪肝疾病及其防治[J]. 河北渔业, 2007(7):47-48.

NIU H X, QI F, JIA L. Fatty liver disease of fish under intensive culture and its control[J]. Hebei Fisheries, 2007(7):47-48. (in Chinese)

[2]
李易珊. 常见淡水鱼的“瘦身鱼”养殖技术:妙招让鱼添身价[J]. 海洋与渔业, 2019(9):58-60.

LI Y S. The breeding techniques of “weight-loss fish” for common freshwater fish:ingenious ways to increase the value of fish[J]. Ocean and Fishery, 2019(9):58-60. (in Chinese)

[3]
唐洪玉, 郑永华. 瘦身鱼养殖技术[J]. 重庆水产, 2020(4):16-18.

TANG H Y, ZHENG Y H. The breeding techniques of weight-loss fish[J]. Chongqing Fisheries, 2020(4):16-18. (in Chinese)

[4]
曹英楠, 李虹, 杨超, 等. 草鱼瘦身养殖过程中营养与风味品质变化规律研究[J]. 中国水产科学, 2023, 30(2):178-193.

CAO Y N, LI H, YANG C, et al. Study of the changes of nutrition and flavor quality of grass carp (Ctenopharyngodon idellus) during lean culture[J]. Journal of Fishery Sciences of China, 2023, 30(2):178-193. (in Chinese)

[5]
麦康森. 水产动物营养与饲料学[M]. 2版. 北京: 中国农业出版社, 2011.

MAI K S. Aquatic animal nutrition and feed science[M]. 2nd ed. Beijing: China Agriculture Press, 2011. (in Chinese)

[6]
孙红梅, 张本刚, 齐耀东, 等. 当归药材资源调查与分析[J]. 中国农学通报, 2009, 25(23):437-441.

SUN H M, ZHANG B G, QI Y D, et al. Survey and analysis on the resource of Angelica sinensis[J]. Chinese Agricultural Science Bulletin, 2009, 25(23):437-441. (in Chinese)

[7]
ZHONG T, DUAN X Y, ZHANG H, et al. Angelica sinensis suppresses body weight gain and alters expression of the FTO gene in high-fat-diet induced obese mice[J]. BioMed Research International, 2017, 2017:6280972.

[8]
WU Y C, HSIEH C L. Pharmacological effects of Radix Angelica sinensis (Danggui) on cerebral infarction[J]. Chinese Medicine, 2011, 6:32.

DOI

[9]
KUANG X, YAO Y, DU J R, et al. Neuroprotective role of Z-ligustilide against forebrain ischemic injury in ICR mice[J]. Brain Research, 2006, 1102(1):145-153.

DOI PMID

[10]
GUO S J, WANG G F, YANG Z X. Ligustilide alleviates the insulin resistance,lipid accumulation,and pathological injury with elevated phosphorylated AMPK level in rats with diabetes mellitus[J]. Journal of Receptor and Signal Transduction Research, 2021, 41(1):85-92.

DOI

[11]
张博, 卢丽枝, 谷旭, 等. 天然植物饲料的生物学功能与应用研究[J]. 饲料工业, 2022, 43(24):9-12.

ZHANG B, LU L Z, GU X, et al. Biological function and application of natural plants feed[J]. Feed Industry, 2022, 43(24):9-12. (in Chinese)

[12]
孟兆娜, 陈玉春, 刘敏. 复方中草药对镜鲤(Cyprinus carpio var. specularis)幼鱼非特异性免疫功能的影响[J]. 东北农业大学学报, 2011, 42(3):54-60.

MENG Z N, CHEN Y C, LIU M. Effect of Chinese herbal compounds on nonspecific immunity of Cyprinus carpio var. specularis juvenile fish[J]. Journal of Northeast Agricultural University, 2011, 42(3):54-60. (in Chinese)

[13]
王荻, 廉超, 刘红柏. 中草药添加剂对施氏鲟生长及血液生化指标的影响[J]. 水产学杂志, 2016, 29(3):16-20.

WANG D, LIAN C, LIU H B. Effects of Chinese herbal additives on growth and serum biochemical parameters in Amur sturgeon (Acipenser schrenckii)[J]. Chinese Journal of Fisheries, 2016, 29(3):16-20. (in Chinese)

[14]
张建明, 张德志, 舒德斌, 等. 4种复方中草药对长江鲟幼鱼生长和免疫的影响[J]. 水产学杂志, 2023, 36(5):49-57.

ZHANG J M, ZHANG D Z, SHU D B, et al. Effects of four compound Chinese herbal medicines on growth and immune of juvenile Dabry’s sturgeon Acipenser dabryanus[J]. Chinese Journal of Fisheries, 2023, 36(5):49-57. (in Chinese)

[15]
LI H T, TANG S Y, DU W H, et al. The effects of ethoxyquin and Angelica sinensis extracts on lipid oxidation in fish feeds and growth,digestive and absorptive capacities and antioxidant status in juvenile red carp (Cyprinus carpio var. xingguonensis):a comparative study[J]. Fish Physiology and Biochemistry, 2019, 45(1):43-61.

DOI

[16]
LI H T, MA Y T, LIU Y, et al. Integrated biomarker parameters response to the toxic effects of high stocking density,CuSO4,and trichlorfon on fish and protective role mediated by Angelica sinensis extract[J]. Fish Physiology and Biochemistry, 2020, 46(5):1679-1698.

DOI

[17]
National Research Council. Nutrient requirements of fish[S]. Washington,D.C.:National Academy Press 1993.

[18]
LI H T, YANG D D, LI Z H, et al. Effects of Angelica sinensis extracts on lipid oxidation in fish feeds and growth performance of juvenile Jian carp (Cyprinus carpio var. Jian)[J]. Animal Nutrition, 2019, 5(1):109-114.

DOI

[19]
黄晓兰, 王苗苗, 刘海静, 等. 当归副产物对颗粒饲料的保护作用及其对鲫生长和缺氧应激的影响[J]. 动物营养学报, 2025, 37(2):1173-1187.

DOI

HUANG X L, WANG M M, LIU H J, et al. Protective effects of Angelica sinensis by-product on pellet feed and its effects on growth and hypoxic stress in crucian carp[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):1173-1187. (in Chinese)

[20]
REDDERSEN B, FRICKE T, WACHENDORF M. Effects of sample preparation and measurement standardization on the NIRS calibration quality of nitrogen,ash and NDFom content in extensive experimental grassland biomass[J]. Animal Feed Science and Technology, 2013, 183(3/4):77-85.

DOI

[21]
LI H T, LIU H J, WU S Y, et al. Effects of ferulic acid on respiratory metabolism,oxidative lesions,and apoptotic parameters in gills and red blood cells of carp (Cyprinus carpio var. Jian) response to copper[J]. Antioxidants, 2024, 13(3):314.

DOI

[22]
CHELI F, BATTAGLIA D, PINOTTI L, et al. State of the art in feedstuff analysis:a technique-oriented perspective[J]. Journal of Agricultural and Food Chemistry, 2012, 60(38):9529-9542.

DOI

[23]
AKRAMI R, GHARAEI A, MANSOUR M R, et al. Effects of dietary onion (Allium cepa) powder on growth,innate immune response and hemato-biochemical parameters of beluga (Huso huso Linnaeus,1754) juvenile[J]. Fish & Shellfish Immunology, 2015, 45(2):828-834.

[24]
MABE L T, SU S Y, TANG D, et al. The effect of dietary bamboo charcoal supplementation on growth and serum biochemical parameters of juvenile common carp (Cyprinus carpio L.)[J]. Aquaculture Research, 2018, 49(3):1142-1152.

DOI

[25]
LI H T, WU M, JIANG J, et al. The extracts of Angelica sinensis restore the digestive and absorptive capacity through improving antioxidant status in digestive organs of fish treated with trichlorfon[J]. Aquaculture Research, 2019, 50(2):490-504.

DOI

[26]
唐黎, 李辉, 王吉桥, 等. 中草药对瓦氏黄颡鱼生长影响的研究[J]. 河北渔业, 2010(11):1-3.

TANG L, LI H, WANG J Q, et al. Effects of herbs to the growth of the yellow catfish Pseudobagrus vachelli[J]. Hebei Fisheries,2010(11):1-3. (in Chinese)

[27]
LI H T, LU L, ZHANG R M, et al. The extracts of Angelica sinensis inhibit lipid oxidation in fish erythrocytes and improve growth,digestive,absorptive and antioxidant capacity in juvenile Jian carp (Cyprinus carpio var. Jian)[J]. Aquaculture Nutrition, 2019, 25(1):119-133.

DOI

[28]
王梦羽, 沈洁, 刘杰, 等. 苍术酮对肥胖斑马鱼的降脂作用[J]. 中成药, 2024, 46(4):1360-1364.

WANG M Y, SHEN J, LIU J, et al. Lipid lowering effect of atractylone on obese zebrafish (Danio rerio)[J]. Chinese Traditional Patent Medicine, 2024, 46(4):1360-1364. (in Chinese)

[29]
HONG Y, JIANG W D, KUANG S Y, et al. Growth,digestive and absorptive capacity and antioxidant status in intestine and hepatopancreas of sub-adult grass carp Ctenopharyngodon idella fed graded levels of dietary threonine[J]. Journal of Animal Science and Biotechnology, 2015, 6(1):34.

DOI

[30]
BAO J, XING Y N, FENG C C, et al. Acute and sub-chronic effects of copper on survival,respiratory metabolism,and metal accumulation in Cambaroides dauricus[J]. Scientific Reports, 2020, 10(1):16700.

DOI

[31]
LONG J, YANG P Y, LIU Y H, et al. The extract of Angelica sinensis inhibits hypoxia-reoxygenation and copper-induced oxidative lesions and apoptosis in branchiae and red blood corpuscles of fish[J]. Veterinary Sciences, 2023, 11(1):1.

DOI

[32]
GOTTLIEB M, WANG Y, TEICHBERG V I. Blood-mediated scavenging of cerebrospinal fluid glutamate[J]. Journal of Neurochemistry, 2003, 87(1):119-126.

PMID

[33]
BOYKO M, STEPENSKY D, GRUENBAUM B F, et al. Pharmacokinetics of glutamate-oxaloacetate transaminase and glutamate-pyruvate transaminase and their blood glutamate-lowering activity in naïve rats[J]. Neurochemical Research, 2012, 37(10):2198-2205.

DOI PMID

[34]
PHILLIPS M C L, MOYES C D, TUFTS B L. The effects of cell ageing on metabolism in rainbow trout (Oncorhynchus mykiss) red blood cells[J]. The Journal of Experimental Biology, 2000, 203(6):1039-1045.

DOI

[35]
杨鸿昆, 黄凯, 阮栋俭. 养殖鱼类脂肪肝及防治研究进展[J]. 水利渔业, 2007, 27(1):4-6.

YANG H K, HUANG K, RUAN D J. Fatty livers of aquaculture fish species and research advances in the control methods[J]. Reservoir Fisheries, 2007, 27(1):4-6. (in Chinese)

[36]
米春芳, 刘庆平. 血浆低密度脂蛋白和高密度脂蛋白亚组分的临床意义及检测研究进展[J]. 中国动脉硬化杂志, 2017, 25(10):1054-1060.

MI C F, LIU Q P. Advances in clinical significance and detection research of plasma low density lipoprotein and high density lipoprotein subunits[J]. Chinese Journal of Arteriosclerosis, 2017, 25(10):1054-1060. (in Chinese)

[37]
周黎, 李俊宜, 何平平, 等. 高密度脂蛋白结构、代谢和功能研究新进展[J]. 中国动脉硬化杂志, 2020, 28(10):911-916.

ZHOU L, LI J Y, HE P P, et al. New progress in the study of structure,metabolism and function of high density lipoprotein[J]. Chinese Journal of Arteriosclerosis, 2020, 28(10):911-916. (in Chinese)

[38]
刘畅, 李圣男, 王洋, 等. 高密度脂蛋白和低密度脂蛋白纳米复合物作为抗癌靶向药物载体的研究进展[J]. 中国新药杂志, 2017, 26(3):285-290.

LIU C, LI S N, WANG Y, et al. Advances in research of high density lipoprotein and low density lipoprotein nano-complexes as anti-cancer drug targeting carriers[J]. Chinese Journal of New Drugs, 2017, 26(3):285-290. (in Chinese)

[39]
廖艳琴, 张春晓. 水产动物肌酸营养的研究进展[J]. 水产学报, 2019, 43(10):2084-2092.

LIAO Y Q, ZHANG C X. Research progress of nutritional effects of creatine on aquatic animals[J]. Journal of Fisheries of China, 2019, 43(10):2084-2092. (in Chinese)

[40]
CIMEN M Y B. Free radical metabolism in human erythrocytes[J]. Clinica Chimica Acta, 2008, 390(1/2):1-11.

DOI

[41]
LINGWOOD D, HARAUZ G, BALLANTYNE J S. Regulation of fish gill Na+-K+-ATPase by selective sulfatide-enriched raft partitioning during seawater adaptation[J]. Journal of Biological Chemistry, 2005, 280(44):36545-36550.

DOI

[42]
LI H T, WU M, WANG J, et al. Protective role of Angelica sinensis extract on trichlorfon-induced oxidative damage and apoptosis in gills and erythrocytes of fish[J]. Aquaculture, 2020, 519:734895.

DOI

[43]
MATÉS J M, SÁNCHEZ-JIMÉNEZ F M. Role of reactive oxygen species in apoptosis:implications for cancer therapy[J]. The International Journal of Biochemistry & Cell Biology, 2000, 32(2):157-170.

DOI

[44]
WINSTON G W, DI GIULIO R T. Prooxidant and antioxidant mechanisms in aquatic organisms[J]. Aquatic Toxicology, 1991, 19(2):137-161.

DOI

[45]
陈剑杰, 曹谨玲, 罗永巨, 等. 氟对鲤鱼鳃组织免疫相关酶及IL-1β表达影响[J]. 核农学报, 2014, 28(6):1092-1098.

DOI

CHEN J J, CAO J L, LUO Y J, et al. Effects of fluoride on the activity of immune-related enzymes and IL-1β protein expression in gill of carp (Cyprinus carpio)[J]. Journal of Nuclear Agricultural Sciences, 2014, 28(6):1092-1098. (in Chinese)

[46]
吕昆伦, 刘丹丹, 张红绪, 等. 水生动物体内谷胱甘肽过氧化物酶的功能及对环境胁迫的响应[J]. 水产科学, 2015, 34(6):399-404.

LV K L, LIU D D, ZHANG H X, et al. Function and response to environmental stresses of glutathione peroxidase in aquatic animals[J]. Fisheries Science, 2015, 34(6):399-404. (in Chinese)

[47]
CHEN J, ZHOU X Q, FENG L, et al. Effects of glutamine on hydrogen peroxide-induced oxidative damage in intestinal epithelial cells of Jian carp (Cyprinus carpio var. Jian)[J]. Aquaculture, 2009, 288(3/4):285-289.

DOI

Outlines

/