INVITED REVIEW

Nutrition and Immune Regulation of Weaned Piglets under Stress Conditions

  • YIN Yulong , 1 ,
  • HE Liuqin 1, 2
Expand
  • 1 Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Processes, Key Laboratory of Agro-Ecological Processes in Subtropical Regions, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 Hunan International Joint Laboratory of Animal Intestinal Ecology and Health, Hunan Key Laboratory of Animal Intestinal Function Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China

Received date: 2025-11-19

  Online published: 2026-01-13

Abstract

Weaned piglets face multiple stressors including nutritional transition, environmental changes and pathogenic invasion at a stage when the immune system and intestinal barrier are still immature, making them prone to oxidative stress, barrier damage, immune dysregulation and gut microbiota imbalance, which in turn impairs growth performance and feed efficiency. Against the backdrop of policies promoting “reduced use and prohibition of antibiotics” in the animal husbandry industry, replacing drug dependence with nutritional strategies that modulate immunity and intestinal health has become an inevitable trend. This review systematically summarizes the common stressors in weaned piglets and their impacts on the gut and immune system, with a focus on the roles of nutritional factors (such as functional amino acids, vitamins and trace minerals) and functional additives (including probiotics, prebiotics, plant extracts and organic acids) in supporting intestinal epithelial repair, enhancing antioxidant defense, regulating mucosal and systemic immunity, and reshaping the gut microbiota and its metabolism. It also discusses formulation strategies and practical considerations under different stress conditions. Finally, the review proposes that future research should move from mechanistic exploration toward context-specific application, thereby providing a reference for establishing antibiotic-free, environmentally friendly and efficient piglet production systems.

Cite this article

YIN Yulong , HE Liuqin . Nutrition and Immune Regulation of Weaned Piglets under Stress Conditions[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 1 -18 . DOI: 10.12418/CJAN2026.001

在现代集约化养猪体系中,仔猪在免疫系统尚未完全成熟的阶段,需同时经历断奶、混群及由乳汁向固体饲粮的营养转变,使得断奶前后成为整个生产周期中应激负荷与免疫挑战最为集中的时期之一。断奶应激会引起小肠绒毛萎缩、隐窝深度增加和肠道通透性升高,并伴随肠道炎症与氧化应激反应,进而破坏肠道消化吸收功能和屏障完整性[1-2]。在实际生产中,断奶应激通常表现为仔猪采食量下降、日增重降低及腹泻频发,不仅对后续生长育肥期的生长性能和肉品质造成不利影响,严重时还会导致仔猪死亡[3-4]。过去,生产中常通过在饲粮中添加抗生素和促生长剂来缓解断奶相关腹泻和生长停滞。然而,自2020年我国禁用以促生长为目的的药物饲料添加剂(中药除外)并要求抗菌药仅可作为兽医治疗用途的政策实施后[5],畜牧业逐步采用以功能性营养添加剂等替抗物以及饲粮优化为核心的营养与肠道免疫综合措施来维持肠道健康和生产效率。在此背景下,以功能性氨基酸、微生物制剂、微量元素、益生菌、益生元、植物提取物和有机酸等为代表的替抗营养调控手段,已被广泛应用于促进断奶仔猪肠道应激损伤修复,成为当前猪营养与免疫领域研究及生产实践的核心方向之一。
以功能性营养素和添加剂为核心的饲粮调控措施,不仅被视为断奶仔猪能量及组织构建成分的供给来源,也是协同调控肠黏膜屏障、先天免疫与适应性免疫以及肠道微生物群落的信号来源,进而影响仔猪在应激状态下的免疫应答强度与肠道健康维持。在黏膜屏障层面,功能性氨基酸能够通过提高断奶仔猪肠道绒毛高度/隐窝深度比值、上调紧密连接蛋白的表达、减轻氧化应激与炎症反应等途径,增强肠道屏障完整性,从而降低病原入侵的风险[6]。在饲粮中添加有机酸或酶制剂能够显著提高断奶仔猪对营养物质的消化利用率,同时改善肠道形态结构并维持肠道屏障功能。这一方法已成为缓解断奶应激对肠道结构与功能不良影响的重要手段[7-8]。在免疫应答层面,营养调控可通过影响肠黏膜巨噬细胞、T细胞功能及免疫球蛋白A(IgA)的产生,改变炎症反应的幅度与持续时间。例如,宁乡猪来源的罗伊氏乳杆菌可以降低断奶仔猪空肠和结肠中促炎细胞因子白细胞介素-6(IL-6)、肿瘤坏死因子-α(TNF-α)基因的表达,提高抗炎细胞因子白细胞介素-10(IL-10)基因的表达,进而改善肠道屏障功能与氧化还原状态[9];在产肠毒素大肠杆菌(enterotoxigenic Escherichia coli,ETEC)感染模型中,单甘油酯混合物能够降低仔猪腹泻发生率、减少细菌易位、缓解炎症反应,并维持其正常生长性能[10]。在肠道微生物及其代谢层面,氨基酸、植物活性成分、有机酸及酶制剂等可重塑断奶期仔猪肠道菌群结构,表现为增加有益菌数量、减少潜在致病菌数量,同时调节短链脂肪酸(SCFA)等代谢产物的产生,最终实现对肠道上皮屏障与黏膜免疫的调控[7,11-13]。断奶应激通过损伤黏膜屏障、加剧炎症反应以及扰乱肠道微生态等多种途径,导致仔猪生长迟缓和饲料利用率下降;而针对性的营养干预则可在“肠道屏障-免疫-微生物-宿主代谢”多层面发挥协同效应,有效减轻断奶应激对生长性能的负面影响。
基于上述框架,首先,本综述将概述断奶仔猪生产中常见的应激类型及其对肠道与免疫系统的损伤机制,聚焦断奶应激与病原感染、环境变化等多因素的交互作用,阐明应激源、肠道屏障、免疫应答与生产效率之间的因果关联;其次,分别从氨基酸、维生素、微量元素、膳食纤维等营养因子,以及益生菌、益生元、植物提取物和有机酸等功能性添加剂入手,总结其在缓解氧化应激及炎症反应、修复黏膜屏障、调节先天免疫和适应性免疫以及重塑肠道微生物方面的作用,并比较不同应激情境下的作用差异与共性特征;最后,在上述机制解析的基础上,探讨从试验控制到生产实践的整合应用策略,同时指出当前研究中的瓶颈与未来值得关注的方向,为构建更加精准、高效且可持续的仔猪营养与免疫调控方案提供参考。

1 仔猪应激损伤与肠道功能失衡

1.1 仔猪免疫系统与肠道发育特点

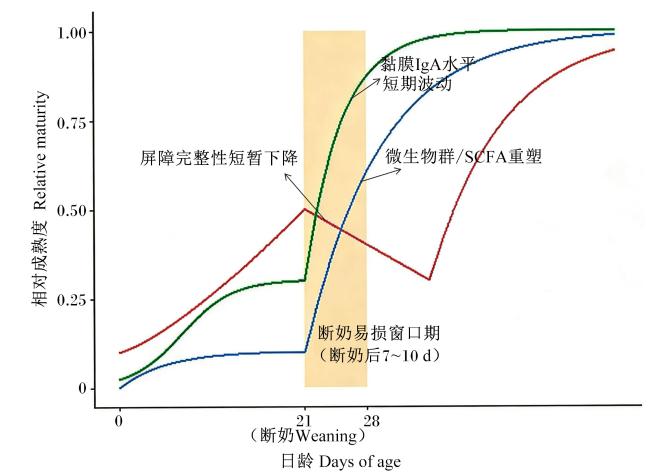
仔猪出生时免疫系统与肠道结构均处于快速发育阶段,这一阶段的发育轨迹在很大程度上决定了其在断奶期抵御应激与病原侵袭的能力。由于猪的胎盘为上皮绒毛膜胎盘,母体免疫球蛋白无法通过胎盘向胎儿转运,导致仔猪出生时血清免疫球蛋白水平极低,主要依赖摄入初乳免疫球蛋白G(IgG)、免疫球蛋白M(IgM)和IgA等获得被动免疫保护[14]。出生后24 h内,仔猪肠上皮对大分子物质具有较高通透性,摄入的初乳免疫球蛋白可通过小肠上皮细胞的胞饮作用迅速吸收进入血液循环;随后肠道进入“封闭期”,对大分子物质的被动吸收能力下降,自身主动免疫逐渐成为机体的主要防御手段。在此过程中,中性粒细胞、巨噬细胞、树突状细胞等先天免疫成分虽在出生时即可检测到,但其趋化、吞噬及抗原呈递等功能仍处于逐步成熟阶段,T细胞、B细胞库及相关细胞因子也在出生后不断完善[15]。与先天免疫相比,黏膜IgA的产生明显滞后。哺乳早期肠腔分泌型免疫球蛋白A(sIgA)主要来源于母乳,而自身来源IgA的分泌则随着日龄增加和抗原暴露逐步增强(图1)。Ding等[16]对1~24日龄不同品种仔猪(桃源黑猪、湘村黑猪和杜洛克猪)的研究发现,随着日龄增加,仔猪回肠黏膜及肠腔中IgA和sIgA水平持续上升,同时多种黏膜细胞因子[如IL-6、IL-10、白细胞介素-17(IL-17)]水平呈现时间依赖性变化。另有研究表明,相较于21日龄断奶,28日龄断奶仔猪在断奶后2周内肠道绒毛高度更高、氧化应激标志物水平更低、抗氧化酶活性更高,且日增重和腹泻状况得到改善,提示适度延长哺乳期有助于缓冲断奶应激对肠道屏障功能及氧化还原平衡的冲击[3]。此外,与21日龄断奶相比,35和42日龄断奶的五指山猪血浆中D-乳酸水平与二胺氧化酶活性均较低,且小肠黏膜紧密连接蛋白表达水平升高;但是21日龄断奶仔猪的空肠与回肠黏膜sIgA水平反而最高,表明早期断奶虽可诱导更强的补偿性IgA反应,却并不能完全避免肠道屏障损伤[17]。在超早期断奶模型中,7和14日龄断奶仔猪血清IgA水平较未断奶仔猪显著降低,肠系膜淋巴结白细胞介素-17a(IL-17a)转录水平升高,而叉头框蛋白P3(FOXP3)和转化生长因子-β(TGF-β)则在超早期断奶仔猪与哺乳仔猪中均保持较高转录水平,提示断奶过早会打破肠道局部辅助性T细胞17(Th17)/调节性T细胞(Treg)相关细胞因子的表达平衡[18]
图1 仔猪出生后肠道黏膜免疫、上皮屏障和微生物群共发育示意图

IgA:免疫球蛋白A immunoglobulin A;SCFA:短链脂肪酸 short-chain fatty acids。

本图用于概括定性趋势,并非具体的定量测定值。The figure illustrates qualitative trends rather than exact quantitative measurements.

Fig.1 Schematic diagram of co-development of intestinal mucosal immunity, epithelial barrier and gut microbiota in piglets after birth

肠道屏障由机械屏障(上皮细胞层及其紧密连接)、化学屏障(如胃肠液、黏液和抗菌肽)以及免疫屏障(如sIgA及各类黏膜免疫细胞)共同构成。在仔猪出生后的最初数周,小肠相对于体重呈快速生长态势,其绒毛高度、隐窝深度以及上皮细胞增殖与分化水平均随日龄增长而显著变化,其中以断奶前后1周肠黏膜形态及屏障相关指标的波动最为显著[19-20]。在正常哺乳条件下,仔猪空肠和回肠紧密连接蛋白通常保持较高或逐渐升高的表达水平,从而限制细胞旁路通透性;而早期断奶或其他强烈应激(如冷、热应激和霉菌毒素暴露等)会显著下调这些紧密连接蛋白的转录或翻译水平,并伴随肠上皮通透性增加或紧密连接结构损坏[21-22]。断奶后1周左右,仔猪小肠常出现绒毛萎缩、隐窝深度增加及紧密连接蛋白表达水平下降,同时活性氧(ROS)生成增多及炎症因子水平升高;若此时叠加病原感染或饲粮组成失衡,将进一步加剧屏障损伤与炎症反应。
猪的肠道相关淋巴组织(GALT)主要包括空肠与回肠派伊尔淋巴结、孤立淋巴滤泡以及肠系膜淋巴结等,是黏膜IgA产生及T/B细胞定植的关键部位[23]。其中,回肠连续派伊尔淋巴结(IPP)的器官发生始于胎儿期第76~91天,出生后进一步形成中心区、边缘区与穹隆区,并伴随大量B细胞的增殖与凋亡,为IgA免疫应答提供了重要结构基础[24-25]。IPP的结构成熟与功能完善高度依赖肠腔微生物定植。无菌仔猪模型研究证实,其IPP的B细胞区发育及IgA分泌能力显著受限,而通过菌群移植或益生菌定植可显著提升肠腔与血清IgA水平,提示微生物信号对黏膜B细胞的多样化及IgA分泌具有重要作用[25-26]。与GALT发育并行,仔猪肠道微生物群在出生至断奶阶段经历快速演替。出生时,粪便及肠道菌群以源自母体皮肤、产道及环境的兼性厌氧菌为主;哺乳期间,逐渐演变为以乳糖及乳源寡糖利用菌为优势菌群;随着日龄增长及营养来源从乳汁向固体饲粮的转变,菌群进一步向拟杆菌门和厚壁菌门中膳食纤维发酵菌、产丁酸菌为主的高多样性稳态群落演替,整体物种多样性增加[27-29]。微生物代谢产物(尤其是SCFA)在上述发育过程中发挥重要枢纽作用。SCFA不仅是结肠上皮细胞的主要能量来源,还可调节黏液分泌及紧密连接蛋白表达,并通过G-蛋白偶联受体和组蛋白去乙酰化酶等通路影响黏膜免疫细胞功能。研究表明,提高猪肠腔SCFA供应有助于促进肠绒毛发育、改善肠道屏障功能并调节局部免疫状态[30-31]。因此,仔猪早期肠道微生物群、GALT及肠道上皮三者间的动态互作(表1),在很大程度上决定了断奶期机体肠道稳态维持能力或易损性,为后续通过营养干预缓解断奶应激及免疫失衡提供了重要生物学依据。
表1 仔猪早期免疫-肠道-微生物共发育的关键时间节点

Table 1 Key time points in early immune-gut-microbiota co-development in piglets[14-31]

时间节点
Time points
免疫特点
Immune characteristics
肠道结构与屏障功能
Intestinal structure and
barrier function
微生物群变化及代谢产物
Microbiota changes and
metabolites
出生0~24 h
0 to 24 h post-birth
血清免疫球蛋白水平极低;完全
依赖初乳摄入免疫球蛋白G(IgG)、
免疫球蛋白M(IgM)、免疫球蛋白A
(IgA)获得被动免疫;先天免疫成
分已存在但功能尚不成熟
小肠绒毛尚未完全发育;
肠道上皮通透性高(开放
肠道),大分子物质(免疫
球蛋白)可经肠上皮转
运进入血液循环
初始定植,多为源自母体皮肤、
产道及环境的兼性厌氧菌;
短链脂肪酸(SCFA)产量极低
1~7日龄
1 to 7 days of age
以被动免疫为主;先天免疫细胞
(中性粒细胞、巨噬细胞等)功能
逐步完善;黏膜IgA主要来源
于乳汁,本体IgA产生开始启动
小肠绒毛高度和隐窝深度随
日龄快速增加;紧密连接蛋
白表达开始上调,机械
屏障逐步建立
兼性厌氧菌逐渐被乳源适应
菌群替代;以能利用乳糖和
乳源寡糖的菌群为主,
SCFA产量缓慢增加
14~28日龄
(断奶前后)
14 to 28 days of
age (pre- to post-
weaning)
本体IgA及分泌型免疫球蛋白A(sIgA)
分泌逐渐增加;白细胞介素-6(IL-6)、
白细胞介素-6(IL-10)、白细胞
介素-17(IL-17)等黏膜细胞因子
水平呈时间依赖性变化;
断奶时机影响IgA水平与
局部细胞因子表达
小肠绒毛进一步拓展、隐窝
加深;紧密连接蛋白
表达到相对较高水平;
断奶前后约1周为屏障重
塑和应激易感窗口
微生物多样性明显升高,
拟杆菌门和厚壁菌门逐渐占
优势;膳食纤维发酵菌和
部分产丁酸菌丰度增加,
SCFA产量上升
断奶后7~10 d
7 to 10 days post-
weaning
若断奶过早,血清IgA水平
下降,肠系膜淋巴结白细胞介
素-17a(IL-17a)、叉头框
蛋白P3(FOXP3)、转化生长因
子-β(TGF-β)等转录水平
改变;辅助性T细胞17(Th17)/
调节性T细胞(Treg)相关细胞
因子表达格局发生重塑
常见绒毛萎缩、隐窝加深;
紧密连接蛋白表达下调,上皮
通透性增加,二胺氧化酶
活性和D-乳酸水平升高;
活性氧(ROS)生成
增多和促炎细胞因子
表达水平上升
肠道菌群结构快速重塑,
部分情况下多样性短暂
下降;SCFA组成改变,若
叠加营养失衡或病原感染,
易出现菌群失衡和炎
症性代谢谱
28~64日龄
28 to 64 days of age
黏膜IgA与T/B细胞应答
逐渐接近功能成熟,免疫
记忆逐步建立
绒毛结构与紧密连接蛋白
多数情况下恢复或接近稳定;
肠道屏障完整性改善,
通透性下降
微生物群趋于高多样性稳态,
产丁酸菌和其他有益菌稳定
存在;SCFA(尤其丁酸)供
能与免疫调节作用增强

1.2 主要应激类型及其作用机制

仔猪早期发育阶段主要面临断奶、饲粮转变、环境变化、病原(细菌/病毒)感染及抗生素暴露等因素引发的应激,这些因素通过干扰采食行为与营养组成、破坏黏膜免疫及微生物稳态或直接损伤肠道上皮结构,最终导致肠道屏障破坏、炎症反应、氧化应激以及营养向免疫应答倾斜,具体表现为腹泻率升高、生长性能受阻及饲料转化率降低[1,32-33]
断奶期间,仔猪需在短时间内同时承受母子分离、营养来源从乳汁向固体饲粮的剧烈转变、混群饲养及环境改变等多重应激刺激,导致断奶后数日内采食量骤降、日增重减少,小肠绒毛高度降低、隐窝深度增加,消化吸收能力明显受损。这一阶段肠黏膜和全身炎症反应被显著激活,TNF-α、白细胞介素-1β(IL-1β)、IL-6等促炎因子水平上升,超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)等抗氧化酶活性下降,丙二醛(MDA)等脂质过氧化产物水平升高,提示断奶应激打破了机体氧化还原平衡。在生产层面,这些变化与断奶后腹泻率、死亡率升高及饲料转化率下降高度相关,是导致仔猪早期生长停滞的核心诱因之一[33]
在免疫系统尚未完全成熟的断奶阶段,病原相关的免疫应激会进一步放大肠道损伤和营养物质浪费。典型的ETEC可通过F4等菌毛黏附小肠上皮细胞,分泌耐热和不耐热肠毒素,激活环磷酸腺苷/环磷酸鸟苷信号通路,引起分泌性腹泻,同时破坏绒毛结构和水通道蛋白功能,导致肠上皮通透性增加[34]。在ETEC攻毒模型中,断奶仔猪小肠绒毛萎缩,紧密连接蛋白表达下调,局部和系统性炎症因子(如TNF-α、IL-6)水平显著升高,生长性能明显受到抑制[35]。猪流行性腹泻病毒等肠道病毒同样能引起急性水样腹泻和严重绒毛萎缩,削弱肠道吸收面积并诱导强烈炎症反应,在低日龄仔猪中甚至可导致高死亡率[36-37]。此外,猪繁殖与呼吸综合征病毒虽主要攻击呼吸系统和免疫系统,但其长期感染可通过抑制固有免疫和改变细胞因子表达,提高仔猪对继发性细菌或肠道病原感染的易感性,从而间接增加肠道负担和生产损失[38-39]
环境与营养相关应激则多通过调控“内分泌-神经-免疫”轴和肠黏膜局部氧化还原稳态双重途径削弱仔猪肠道功能。热应激是断奶及保育阶段常见的环境胁迫因子。研究表明,热应激可显著降低仔猪采食量与日增重,损伤小肠绒毛结构并下调紧密连接蛋白表达,增加肠上皮通透性,同时升高血液中炎症因子与氧化应激标志物水平[21,40]。此外,当每头断奶仔猪可利用地面面积从0.40~0.43 m2缩减至0.21~0.27 m2时,其血清皮质醇水平上升,淋巴细胞增殖能力与细胞免疫应答受到抑制,日增重、采食量和饲料转化率均下降[41]。霉菌毒素[尤其是脱氧雪腐镰刀菌烯醇(DON)]在断奶仔猪饲粮中广泛存在,即使在较低剂量下,也可通过激活丝裂原活化蛋白激酶(MAPK)等信号通路,诱导肠上皮细胞氧化应激与炎症反应,导致紧密连接蛋白表达下调、绒毛萎缩及营养吸收障碍,并引起生长性能下降[42-43]。研究证实,化学氧化剂(如敌草快、D-半乳糖、百草枯)可用于构建急性或慢性氧化应激模型,其共同作用特征为在肠黏膜中促进ROS生成、降低抗氧化酶活性并损伤肠道屏障结构[44-46]
尽管上述应激源性质各异,但其下游效应在很大程度上汇聚于“氧化应激-炎症-屏障损伤”这一共同通路。无论是断奶、病原感染、热应激,还是DON或化学氧化剂暴露,均能引起仔猪肠黏膜中ROS/活性氮生成增加、还原型谷胱甘肽(GSH)耗竭以及SOD、GSH-Px、过氧化氢酶(CAT)等抗氧化酶活性降低,并且氧化还原稳态失衡进一步激活核因子-κB(NF-κB)、NOD样受体热蛋白结构域相关蛋白3(NLRP3)等炎症相关通路,促进促炎细胞因子和趋化因子释放,加重肠上皮细胞死亡和紧密连接破坏[47-48]。从机理上看,这一共同通路不仅解释了不同应激条件下断奶仔猪在肠道形态、免疫应答及生长性能变化上的相似性,也为通过营养干预调控氧化应激和炎症反应以缓解应激损伤提供了明确的作用靶点与理论依据。

2 营养与免疫调控的关键靶点与机制

2.1 功能性氨基酸

在断奶应激及其叠加的氧化应激与免疫应激背景下,氨基酸不再只是提供氮源与合成蛋白质的结构单元,也能通过参与能量代谢、催化GSH合成、介导黏液层构建及调控免疫细胞信号转导等途径维持机体代谢稳态[49]。研究表明,谷氨酰胺(Gln)、谷氨酸(Glu)、天冬氨酸(Asp)、丝氨酸(Ser)、苏氨酸(Thr)、精氨酸(Arg)以及含硫氨基酸蛋氨酸(Met)、半胱氨酸(Cys)在维持断奶仔猪肠道屏障完整性、缓解氧化应激、塑造黏膜免疫及改善生长性能方面具有代表性作用。本综述依据功能特征将上述氨基酸划分为2类:一类以Gln、Glu、Ser和Asp为代表,主要作用于“肠道能量-抗氧化”轴;另一类包括Thr、Arg、Met和Cys,主要与“肠道屏障-黏膜免疫”轴相关。同时,本文结合不同应激模型,深入探讨上述氨基酸的作用机制。为直观对比不同功能性氨基酸在断奶仔猪应激模型中的应用条件与调控机制,本文对近年代表性试验的基础饲粮、应激类型、氨基酸补充水平及主要指标结果[6,45,50-54]进行了归纳,详见表2
表2 功能性氨基酸在断奶仔猪应激模型中的应用

Table 2 Application of functional amino acids in weaned piglet stress models

氨基酸/组合
Amino acid/
combination
应激情景/模型
Stress context/
model
基础饲粮与试验期
Basal diet and
test period
补充水平
Supplemental level
主要肠道/免疫终点(断奶仔猪)
Main intestinal/immune
endpoints (weaned piglets)
生长性能结果
Growth performance
outcomes
主要文献
Key
references
L-谷氨酰胺
L-Gln
生理性
断奶应激
常规玉米-豆粕型
饲粮;试验期28 d
1% L-Gln 提高空肠绒毛高度及绒毛高度/隐窝深度
比值;上调紧密连接蛋白表达;增强抗氧化
酶活性,降低黏膜炎症标志物水平;
改善消化酶活性和营养吸收效率
提高日增重和终体重,
改善饲料转化效率,降低
腹泻发生率
[6]
甘氨酰-谷氨酰胺
Gly-Gln
生理性
断奶应激
常规玉米-
豆粕型饲粮;
试验期28 d
0.250%、0.375%、
0.500% Gly-Gln
提高血清免疫球蛋白G(IgG)、免疫球
蛋白A(IgA)、免疫球蛋白M(IgM)水平;
增强空肠抗氧化酶[超氧化物歧化酶(SOD)、
谷胱甘肽过氧化物酶(GSH-Px)]活性,
降低丙二醛(MDA)水平;增加绒毛高度及
绒毛高度/隐窝深度比值;上调紧密连接蛋白
转录水平;提高营养物质表观消化率
提高平均日增重、终体
重和平均日采食量,
改善料重比
[50]
L-谷氨酸
L-Glu
脱氧雪腐镰刀菌
烯醇(DON)污染
饲粮诱导肠道毒性/
氧化应激
DON污染玉米-
豆粕型饲粮;
试验期37 d
2% L-Glu DON诱导导致小肠绒毛萎缩、隐窝增生、
杯状细胞减少及活性氧(ROS)、MDA水
平升高;补充Glu后,肠道病理损伤减轻,
GSH-Px、SOD等抗氧化酶活性恢复,炎性
细胞因子表达下调,紧密连接蛋白表达改善
部分逆转DON诱导的生长
抑制,日增重和饲料转化
效率明显改善
[51]
谷氨酸/天冬氨酸
Glu/Asp
低蛋白质饲粮+
过氧化氢(H2O2)
氧化应激模型
(断奶期)
低蛋白质饲粮
(粗蛋白质水平
18%);试验期14 d
2% Glu和
1% Asp
低蛋白质饲粮+H2O2组小肠绒毛高度
下降、隐窝变深,紧密连接蛋白表达下降,
ROS和MDA水平升高;补充Glu和Asp
可部分恢复绒毛形态和紧密连接蛋白表达,
改善线粒体能量代谢相关酶活性,降低黏膜
氧化应激和炎性细胞因子水平
在低蛋白质饲粮中组合
添加Glu与Asp有助于维持
或部分恢复日增重,减轻
氧化应激对饲料利用
效率的不利影响
[52]
L-丝氨酸
L-Ser
早期断奶应激
(21日龄断奶)
常规玉米-豆粕型
饲粮;试验期28 d
0.2% L-Ser 显著提高回肠绒毛高度及绒毛高度/隐窝深度
比值,上调紧密连接蛋白表达;降低
ROS、MDA及黏膜促炎细胞因子水平,
增加杯状细胞数量和黏液层完整性
在断奶应激条件下,
补充L-Ser后
平均日增重有一定提高,
腹泻率降低
[53]
天冬氨酸
Asp
D-半乳糖诱导的
慢性氧化应激
10 g/kg D-半乳糖,
连续饲喂28 d,模
拟慢性氧化应激与
肠道损伤,在此
基础上补充Asp
0.25%、0.50%、
1.00% Asp
D-半乳糖诱导组小肠绒毛缩短、隐窝深度
增加,受体相互作用蛋白3(RIP3)-混合谱系
激酶结构域样蛋白(MLKL)介导的坏死样
细胞死亡增强,肠道ROS和脂质过氧化程度增加,
菌群多样性下降;补充Asp后,小肠绒毛高度和
紧密连接蛋白表达改善,受体相互作用蛋白1
(RIP1)/RIP3-线粒体功能相关通路被
调节,有益菌丰度增加
Asp组在氧化应激条件下
维持或改善日增重和饲料
转化效率,部分恢复
整体生长和免疫功能
[45]
L-蛋氨酸
L-Met
宫内生长受限
(IUGR)+断奶应激
(21日龄断奶)
常规玉米-
豆粕型饲粮;
试验期28 d
5.2 g/kg L-Met IUGR仔猪绒毛变短、隐窝深度增加,紧密连接
蛋白表达下调,谷胱甘肽(GSH)水平降低、
MDA水平升高;补充L-Met后,提高肠道GSH
含量和GSH-Px等抗氧化酶活性,降低
MDA水平,部分恢复紧密连接蛋白表达和
绒毛结构,减轻屏障损伤
Met组IUGR仔猪平均日增
重和料重比明显改善,部分
接近同窝正常体重仔猪水平
[54]
Gln是肠上皮细胞首选燃料与抗氧化底物。仔猪断奶后,小肠绒毛萎缩、隐窝增生和通透性增加,使得肠上皮对可利用能量和抗氧化底物的需求显著上升。大量断奶仔猪饲养试验结果显示,饲粮中适度补充Gln可有效改善仔猪生长性能与肠道发育状况。Tan等[6]在柯乐×大白杂交断奶仔猪研究中发现,饲粮中添加Gln可提高仔猪日增重,增加空肠绒毛高度及绒毛高度/隐窝深度比值,并上调紧密连接蛋白表达与抗氧化酶活性。这一结果提示,Gln通过满足肠上皮能量代谢需求与GSH合成需求,实现肠道屏障功能修复与氧化还原状态的改善。在低初生重仔猪模型中也观察到相似效应,1~12日龄口服Gln在断奶前后均可改善小肠形态结构与消化吸收能力,且部分有益效应可持续至断奶后生长阶段[55]。另有研究表明,在断奶仔猪饲粮中添加甘氨酰-谷氨酰胺(Gly-Gln)能提高生长性能、抗氧化能力及营养物质表观消化率,表明以肽形式供给Gln可有效支持肠道修复[50]。Glu与Asp作为肠上皮细胞重要的氧化底物,同时参与三羧酸循环、尿素循环及氮代谢重分配过程,在多种猪氧化应激模型中系统评估了这类非必需氨基酸的肠道保护作用。例如,在DON污染饲粮模型中发现,添加Glu能显著改善断奶仔猪小肠绒毛形态、降低乳酸脱氢酶释放量与MDA水平,有效减轻小肠氧化损伤与屏障结构破坏[51];在敌草快诱导的急性氧化应激模型中证实,Glu与Asp联合补充可提高肠道GSH水平和SOD活性,降低MDA水平与蛋白质氧化损伤程度,并部分恢复仔猪体重增长,提示在断奶后氧化应激状态下肠道对“能量型氨基酸”的利用优先级明显提高[56]。Ser是介导一碳代谢与催化GSH合成的核心物质,兼具“代谢底物”和“信号分子”的双重属性。研究表明,在过氧化氢(H2O2)或脂多糖(LPS)诱导的氧化应激条件下,Ser通过提供一碳单位与催化GSH合成,维持肠上皮细胞氧化还原平衡与增殖分化能力[57]。在21日龄早断奶仔猪饲粮中添加0.2% L-Ser,可显著提高回肠绒毛高度及绒毛高度/隐窝深度比值,上调紧密连接蛋白表达,并降低肠黏膜MDA水平和促炎细胞因子水平,提示Ser可有效缓解断奶应激引发的肠道屏障损伤及氧化炎症反应[53]。细胞和动物模型试验进一步证实,在氧化应激条件下,外源Ser通过催化GSH合成和激活核因子E2相关因子2(Nrf2)相关通路,实现肠道氧化还原稳态的恢复[57]。Ser在猪、人、小鼠等物种中展现出调控氧化应激、免疫反应及肠道微生物多样性作用,凸显其在抗应激营养调控中的潜在应用价值[49]。Asp不仅作为能量底物参与三羧酸循环,还参与嘌呤合成、尿素循环及部分神经内分泌信号通路。在D-半乳糖诱导的慢性氧化应激仔猪模型中发现,长期氧化应激会显著扰乱肠道微生物平衡与代谢组图谱,并通过受体相互作用蛋白1(RIP1)/受体相互作用蛋白3(RIP3)介导的线粒体损伤放大ROS产生;在此基础上补充Asp可部分恢复肠绒毛结构,降低黏膜ROS水平与脂质过氧化程度,改善线粒体膜电位,并重塑与抗氧化功能相关的关键菌群结构[45]。综上所述,在断奶氧化应激情境下,Gln、Glu、Ser和Asp通过“肠道能量-抗氧化”轴保障肠上皮能量供应、GSH合成及线粒体功能的稳定,进而维护肠道健康。
与肠道屏障-黏膜免疫相关的氨基酸主要包括Thr、Arg、Met和Cys。Thr是黏蛋白2(MUC2)等黏液层蛋白的高度富集氨基酸,对黏液层结构完整性与sIgA锚定具有决定性作用。在宫内生长受限(IUGR)断奶仔猪中发现,IUGR会导致仔猪日增重下降,回肠促炎因子水平升高,并显著降低MUC2水平与杯状细胞密度;在此基础上补充L-Thr可有效提高仔猪饲料转化效率,增加肠道MUC2和sIgA水平,同时减轻肠道炎症反应,提示Thr在“黏液-sIgA-炎症”轴中具有关键作用[58]
研究对比了不同饲粮复杂度与Thr水平对断奶仔猪的影响。结果表明,在低复杂度(易消化)饲粮条件下适度提高Thr水平,能够改善仔猪血浆IgA水平及部分黏膜免疫指标[59]。针对断奶腹泻仔猪的研究进一步证实,MUC2缺失或糖基化异常与腹泻发生密切相关[60],这一结论从反面佐证了Thr在维持黏液层-肠道微生物-黏膜免疫互作稳态中的重要性。Arg可通过一氧化氮合成酶途径产生一氧化氮,参与肠黏膜血流调节、上皮修复和先天免疫杀菌过程,同时也是多胺和脯氨酸合成的前体。在饲粮中添加DON的断奶仔猪模型中发现,饲粮补充L-Arg可改善小肠绒毛高度,上调氨基酸转运载体表达,从而缓解DON诱导的肠道毒性损伤[61]。Zheng等[62]在敌草快氧化应激仔猪模型中进一步表明,饲粮中补充Arg可调节Arg代谢通路及抑制炎症细胞因子表达,保护断奶仔猪的肠道功能。Met可在体内代谢为Cys,并通过转硫途径参与GSH合成,同时是GSH-Px等含硫抗氧化酶的关键底物。在DON污染、H2O2刺激等诱导的氧化应激模型中,断奶仔猪肠道中GSH/GSH-Px抗氧化体系普遍呈现高周转状态,GSH/氧化型谷胱甘肽(GSSG)比值下降,并伴随绒毛萎缩与屏障结构受损[51-52,63];在此背景下,提高含硫氨基酸及其辅因子的供给水平,有助于恢复GSH/GSSG比值并增强GSH-Px等抗氧化酶活性,从而减轻黏膜损伤并改善肠道防御功能[64-65]。结合前述Ser通过一碳代谢支持GSH合成的研究结果,可以认为Ser-Met-Cys共同构成了断奶氧化应激下肠道GSH合成与抗氧化防御网络的核心氨基酸调控模块。
综上所述,断奶伴随的氧化应激与炎症反应会改变氨基酸在体内的代谢分配优先级。在长期应激状态下,氨基酸优先被分流至肠道与免疫器官,用于维持机体生存需求而非生长需求。近年来,“低蛋白质饲粮+功能性氨基酸定向补充”的营养调控策略被提出并逐渐应用。因此,在断奶应激背景下,针对性补充关键功能性氨基酸可在保障肠道健康的前提下适度降低饲粮粗蛋白质水平,进而减轻仔猪机体代谢负担与养殖过程中的环境污染。

2.2 维生素

在断奶应激与病原、霉菌毒素等因素的复合作用下,维生素不仅作为传统意义上的必需营养素,更是免疫细胞代谢及抗氧化信号通路中的关键调节因子。脂溶性维生素(维生素A、维生素D、维生素E)以及水溶性维生素(维生素B、维生素C)在调控断奶仔猪黏膜免疫、自由基清除及应激适应方面发挥互补作用,其有效供给量往往需高于满足生长需要的最低推荐量。在断奶仔猪中,适度提高饲粮维生素A水平可同步改善肠道屏障功能、抗氧化能力和肠道免疫状态。例如,当饲粮维生素A水平提升至400 IU/kg时,可显著降低断奶仔猪腹泻率,提高血清CAT活性,上调空肠和回肠紧密连接蛋白基因的表达,并提高回肠白细胞介素-4(IL-4)、白细胞介素-5(IL-5)、IL-10转录水平,同时改善结肠菌群结构,整体呈现黏膜屏障与黏膜免疫的协同增强效应[66];另有研究表明,断奶仔猪补充适量维生素A可提高血清免疫球蛋白水平及抗氧化酶活性,降低脂质过氧化程度[67]。维生素D(尤其是25-羟基维生素D3)在断奶仔猪中表现出比等量维生素D3更强的免疫调节与抗氧化功效,补充25-羟基维生素D3可在不影响采食量的前提下提升仔猪平均日增重,提高血清总超氧化物歧化酶(T-SOD)、GSH-Px、CAT活性和IgA、IgG水平,并降低血清IL-6、TNF-α水平,同时增强空肠紧密连接蛋白表达,提示其可改善抗氧化能力与肠道屏障功能,并提升机体免疫功能[68]。维生素E作为主要的脂溶性抗氧化剂,在脂质过氧化负荷较高的模型中作用尤为关键。使用过氧化油脂饲喂断奶仔猪会显著升高血清及肠道硫代巴比妥酸反应物(TBARS)水平、降低α-生育酚水平,而在饲粮中添加维生素E可部分恢复血清维生素E水平,改善氧化应激相关指标,优化外周血免疫参数[69]。此外,将DL-α-生育酚乙酸酯与维生素C联合添加于断奶仔猪饲粮,可减轻氧化损伤,提升淋巴细胞增殖能力及体液免疫水平,表明两者在断奶应激状态下具有协同抗氧化与免疫调节作用[70]。应激状态下,维生素C既可直接清除自由基,又可与GSH协同维持机体抗氧化循环。断奶后在饲粮中联合补充维生素A及联合维生素C钠盐,可显著提高仔猪日增重和料重比,提高血清IgG、IgM水平、总抗氧化能力(T-AOC)及SOD、GSH-Px活性,并降低MDA水平,提示维生素C在抗氧化与免疫调控通路中发挥重要辅助作用[71]。关于B族维生素,针对断奶仔猪的直接试验多集中于维生素B6、维生素B3等个别成分,相关结果显示,后断奶阶段适度提高饲粮维生素B6或维生素B3水平,可下调仔猪肠道炎性细胞因子表达,上调氨基酸转运体表达,并改善肠道屏障相关指标[72];但目前针对其他B族维生素在断奶仔猪免疫调控中作用的试验数据较为有限,更多证据来源于全阶段猪只或其他种属的研究。在断奶等高应激阶段,至少需维持NRC推荐的B族维生素供给量或适度提高供给水平,这有助于避免仔猪潜在的免疫功能受损及肠道健康下降[73]

2.3 微量元素

在断奶仔猪营养与免疫调控中,锌、铜、铁、锰、硒和碘被视为主要的必需微量元素,这些元素可通过参与机体抗氧化酶体系构成、甲状腺激素合成及免疫相关酶系激活等生理过程,调控仔猪应激状态下的肠道屏障功能与免疫应答[74]。锌是多种转录因子和铜锌超氧化物歧化酶的必需辅因子,在维持肠道上皮屏障完整性、抗氧化防御及先天免疫功能中起核心作用[75]。在断奶仔猪饲粮中添加3 000 mg/kg氧化锌,可显著降低仔猪腹泻率、改善日增重,并通过抑制干扰素-γ(IFN-γ)、IL-1βIL-6及TNF-α等促炎细胞因子表达和上调紧密连接蛋白表达,缓解断奶应激引发的肠道黏膜炎症与屏障损伤[76]。但高剂量氧化锌的应用会造成环境排放污染与耐药菌选择压力,目前有多个国家已限制其使用。近年来,相关替代方案的研究主要聚焦于中低剂量有机锌制剂或有机酸-微量元素螯合物。研究表明,在断奶仔猪饲粮中补充800 mg/kg乳酸锌,可达到与2 500 mg/kg氧化锌相当的应用效果,既能维持或改善仔猪生长性能,又可增强肠道抗氧化能力(提高T-AOC及SOD活性,降低MDA水平),同时优化肠道菌群结构[77]。铜参与铜锌超氧化物歧化酶、细胞色素氧化酶和溶菌酶等的合成,兼具抗氧化和抗菌作用。在仔猪断奶阶段,饲粮中添加125~250 mg/kg铜(硫酸铜或氯化铜形式),可有效提高仔猪生长速度、降低死亡率与腹泻发生率,抑制大肠杆菌等肠道致病菌增殖、改善机体能量代谢效率以及缓解氧化应激[78]。然而,高剂量无机铜的长期使用同样存在环境积累风险与耐药性隐患。研究表明,在不影响仔猪生长性能的前提下,采用甘氨酸螯合铜或蛋氨酸螯合铜等有机铜源替代部分无机铜,不仅能降低粪便中铜的排泄量,还可在一定程度上改善机体抗氧化能力与肠道菌群组成,不过此类有机铜源对断奶仔猪黏膜免疫功能调控方面的研究还较为有限[79]。硒是谷胱甘肽过氧化物酶、硫氧还蛋白还原酶等多种抗氧化酶的核心成分,对缓解仔猪断奶相关氧化应激和支持免疫反应尤为重要。在断奶仔猪中,调整饲粮中锰与硒水平可影响血浆锰超氧化物歧化酶和GSH-Px活性以及T-AOC,适度提高锰和硒有助于提升抗氧化酶活性、降低脂质过氧化程度,但对生长性能的影响效果较小[80-81]。铁元素是血红蛋白合成、线粒体功能维持及免疫细胞增殖分化的必需物质[82]。由于猪胎盘储铁能力有限,且母乳含铁量极低,仔猪极易发生缺铁性贫血。断奶仔猪适量补铁,可促进肠道发育、增强免疫功能;而铁缺乏或过量摄入,均会对肠道屏障完整性与微生物稳态造成损伤[83]。不同铁源对比试验表明,铁甘氨酸等有机铁源相较于传统硫酸铁,具有更高的生物利用度,可提高断奶仔猪肠道铁沉积量与紧密连接蛋白表达水平,增强回肠黏膜钠-葡萄糖协同转运蛋白1(SGLT1)的表达,并降低炎性细胞因子转录水平,从而改善肠道屏障功能和免疫状态[84]。但需要注意的是,当饲粮铁水平接近或超过仔猪耐受上限时,会增加腹泻发生率,改变肠道免疫相关基因表达并扰乱肠道菌群结构(如增加潜在条件致病菌丰度)[85],提示断奶仔猪铁营养需求呈现明显的“倒U型曲线”特征。在ETEC感染模型中,通过注射或饲粮途径为断奶仔猪适量补铁,可减少腹泻率,降低血清IL-6和TNF-α水平,同时提高血清IgA、IgG和IgM水平,表明纠正铁缺乏状态可同步改善仔猪系统性免疫与肠黏膜免疫应答[86]。锰是线粒体锰超氧化物歧化酶、精氨酸酶和多种糖代谢酶的必需成分,在抗氧化和骨骼发育中具有重要作用。在断奶仔猪饲粮中补充20~80 mg/kg的锰-赖氨酸与谷氨酸复合物可提高血清锰超氧化物歧化酶活性和T-AOC,并改善胫骨或掌骨的力学特性和矿物沉积,对生长具有一定促进作用[87]。碘的主要生理功能是参与甲状腺激素合成,从而调节基础代谢率和机体生长发育[88]。在断奶仔猪相关研究中表明,正常营养条件下额外补充水溶性碘并未使仔猪生长性能、腹泻防控效果得到显著改善,也未观察到明确的免疫功能提升效应[89]。而长期摄入高剂量碘,则可能引发甲状腺肥大和生长抑制,甚至影响铁代谢,因此碘在实际生产中的应用重点在于规避缺乏与中毒风险,而非作为免疫调控的功能性添加剂。

2.4 膳食纤维、益生菌、益生元、植物提取物和有机酸

膳食纤维、益生菌、益生元、植物提取物和有机酸主要通过“微生物-免疫”轴缓解断奶仔猪应激反应。在断奶仔猪中,可发酵膳食纤维(如菊粉、果寡糖、微纤维素)可通过重塑肠道菌群结构和促进SCFA生成,间接影响肠黏膜形态结构与炎症反应过程。以菊粉为代表的可溶性纤维,可显著改善断奶仔猪生长性能,提高空肠绒毛高度/隐窝深度比值,并增加拟杆菌门和部分丁酸产生菌的丰度,同时上调紧密连接蛋白转录水平,因此饲粮中添加适量菊粉有利于维持肠道屏障完整性与肠道微生态稳定[90]。Zhang等[91]研究表明,饲粮中添加适量果寡糖能降低断奶仔猪腹泻率,提高小肠抗氧化酶活性并上调紧密连接相关基因表达。在ETEC感染模型中,果寡糖同样可减轻仔猪绒毛萎缩与屏障损伤,改善肠道抗氧化状态。微纤维素作为一种结构性纤维,在仔猪后断奶阶段被证实可以在不降低采食量的前提下提高日增重,增加结肠丁酸水平并减少腹泻发生率[92]。由此可见,在合理剂量与适宜物理性质的前提下,可发酵或结构性纤维有助于缓解断奶应激引发的肠道形态与功能损伤。需注意的是,过高添加水平或发酵特性与肠道微生态不匹配的纤维,可能降低饲粮能量密度并抑制采食量,因此实际应用中需结合配方能量水平与原料特性进行综合评估。
益生元与益生菌在断奶仔猪营养调控中常以合生元形式发挥协同作用。果寡糖、菊粉等益生元一方面可为肠道有益菌提供发酵底物,促进乳酸菌、双歧杆菌等优势菌群增殖;另一方面通过提高肠腔SCFA水平,间接改善肠道屏障功能与黏膜免疫状态。Arantes等[93]研究表明,断奶仔猪饲粮中添加复合益生元(果寡糖联合其他低聚糖)可以提高回肠黏膜和血清IgA水平,并上调部分与黏膜防御相关的基因表达,提示早期益生元干预有助于提高黏膜免疫应答能力。在益生菌方面,针对宁乡猪来源罗伊氏乳杆菌的研究显示,该菌株可提高断奶仔猪小肠绒毛高度及绒毛高度/隐窝深度比值,上调紧密连接蛋白及黏蛋白相关基因表达,同时下调空肠和结肠中IL-6、TNF-α的表达,上调IL-10的表达,整体改善肠道屏障功能与炎症状态[9]。芽孢杆菌、乳杆菌、双歧杆菌等菌株均被证实可降低断奶仔猪腹泻率、改善机体氧化还原状态及部分免疫指标(如血清IgG水平、抗氧化酶活性),但不同菌株的调控效果差异较大,因此益生菌的应用需结合宿主品种、菌株特性及添加剂量进行针对性筛选。
植物提取物和有机酸则更多作为功能性添加剂,在断奶应激和病原挑战条件下为仔猪提供额外的抗氧化与抗炎支持。在断奶仔猪饲粮中添加葡萄提取物,可在多个时间节点降低血浆脂质过氧化水平,并在一定程度上改善小肠形态与炎症相关指标[94];葡萄籽原花青素在断奶仔猪模型中同样被证实可以减轻肠道氧化应激,有利于维持肠道菌群稳态与机体氧化还原平衡[95]。在LPS应激模型中,微囊化植物精油及植物提取物混合物能够降低断奶藏猪肝脏和肠道炎性细胞因子表达,上调紧密连接蛋白表达,并改善肠道绒毛高度/隐窝深度比值及部分生长指标,表明该类植物源添加剂在系统性炎症和屏障损伤情境下具有一定的保护作用[96-97]。关于有机酸及其单甘油酯(如丁酸、辛酸及癸酸单甘油酯)的研究显示,在ETEC F18感染模型中,单独添加有机酸或与单甘油酯联合添加,可以降低断奶仔猪腹泻发生率、减少粪便溶血性大肠杆菌排出量和细菌易位,并减轻肠道和全身炎症反应[10,98]。综上所述,膳食纤维、益生元、益生菌、植物提取物和有机酸可通过不同但相互关联的机制来调节微生物群落结构和代谢产物、改善氧化还原状态和炎症反应、强化黏膜屏障功能,从而缓解断奶仔猪应激损伤。

3 从营养调控到实际应用

饲粮配方设计需要根据不同应激情境匹配相应的营养靶点。在断奶应激条件下,饲粮应在保证高消化率能量和蛋白质供给的前提下,适度提高可消化赖氨酸水平,并补充Gln、支链氨基酸等功能性氨基酸,同时通过选用低抗原蛋白质源、乳清蛋白或中链脂肪酸等原料,提高饲粮前期适口性和营养密度,从而减轻断奶后仔猪短期采食量下降对日增重的负面影响[99-101]。此外,在断奶前为仔猪提供营养成分与断奶后饲粮接近的开口料(如含适量可发酵纤维、酵母产物及植物蛋白质的配方),有助于提前训练仔猪消化系统,改善断奶后前2周的采食行为与肠绒毛发育,实现从乳汁到固体饲粮的平稳过渡[102]。在病原或免疫压力较高的场景(如ETEC感染、饲养密度偏高或卫生条件欠佳),饲粮配方应更加侧重“肠道屏障-免疫-微生态”的协同支持。一方面,通过补充Gln、Ser等功能性氨基酸及维生素A、维生素E、锌、硒等营养素,为肠绒毛修复、紧密连接蛋白表达及抗氧化酶活性提升提供物质基础;另一方面,采用有机酸、单甘油酯、植物提取物与益生菌的复合组合,实现抑制致病菌增殖、降低腹泻发生率、减轻炎症反应的综合效果。有机酸及单甘油酯单独或联合添加也可降低仔猪腹泻发生率,减少肠道致病性大肠杆菌排泄量与细菌易位,并在不同程度上缓解炎性细胞因子水平升高,对生长性能起到保护作用;植物源饲料添加剂在病菌感染或高密度饲养条件下,也能改善肠绒毛形态、提高营养物质消化率,并在一定程度上改善日增重和饲料报酬[35,103]
针对以热负荷或系统性氧化应激为特征的应激情境,营养调控措施应突出抗氧化功能。在保证氨基酸平衡的前提下,适度提高维生素E、维生素C、硒及部分植物多酚的供给量,有助于增强GSH-Px、SOD等抗氧化酶活性,减轻脂质过氧化程度与肠上皮氧化损伤,进而间接维护仔猪采食量与生长表现。高于常规水平的维生素E,或维生素E与其他抗氧化添加剂的复合使用,可降低机体炎症标志物水平、改善氧化还原状态,且在某些情况下能提高断奶后仔猪生长速度,或改善高密度饲养条件下的生产表现。从生产全周期视角来看,母猪饲粮中的脂肪酸、抗氧化剂以及特定功能性添加剂,可通过调控初乳与乳汁中脂肪、免疫球蛋白和生物活性因子水平,影响仔猪早期能量供应与被动免疫能力。研究表明,母体营养调控能够提高初乳产量或免疫球蛋白水平,并改善断奶前后仔猪日增重和血浆IgG和IL-10水平。此外,母猪胎次及初乳免疫球蛋白水平也与仔猪后续生长性能和死亡率存在相关性,这提示围产期营养管理与生猪全程生产效率密切相关[104-105]

4 小结与展望

随着现代集约化养猪规模的快速发展,应激诱导的肠道损伤已成为制约生猪生产效率的难题,其本质是氧化应激积累、肠道屏障受损、免疫应答失衡以及肠道微生物紊乱等多因素共同作用的结果。在抗生素使用受限及环境压力日益加大的背景下,单纯依赖药物和高剂量氧化锌等传统方案,已难以持续保障断奶仔猪肠道健康。合理的饲粮营养水平与结构不应仅被理解为提供足量能量和氨基酸的来源,而应被视为调控黏膜屏障功能、免疫网络及肠道微生物与代谢的综合工具。通过功能性氨基酸、维生素和微量元素、膳食纤维、益生菌和益生元以及植物活性成分和有机酸的协同应用,可从多个层面重塑肠道内环境,促使应激反应向适应与修复方向转化,从而在提升健康水平的同时兼顾生长速度和饲料利用率。
面向未来,断奶仔猪营养与免疫的研究需重点围绕4条主线推进:第一,建立更符合生产实际并具有可比性的应激模型和表型评价体系,为不同程度应激匹配相应精准营养干预策略提供基础;第二,利用多组学和因果验证技术,系统解析营养与免疫和微生物互作的关键通路,将当前的关联性证据升级为可操作的靶点;第三,发展能够考虑个体差异、品种差异和养殖场差异等情景下的精确营养模型,使配方设计从平均水平走向分层和分群体化;第四,在大型养猪场开展大规模场景化试验和经济学评估,把实验室层面的营养策略转化为适用于高效、健康和减排目标的产业化方案。综合以上,有望逐步构建既兼顾生产效率,又重视动物健康和环境友好的现代猪业营养管理体系,促进畜牧业的转型升级。

致谢

特别感谢印遇龙院士团队成员前期在仔猪营养代谢与肠道健康领域所做的一系列工作。

[1]
TANG X P, XIONG K N, FANG R J, et al. Weaning stress and intestinal health of piglets:a review[J]. Frontiers in Immunology, 2022, 13:1042778.

[2]
MING D X, WANG J Z, YIN C G, et al. Porous zinc oxide and plant polyphenols as a replacement for high-dose zinc oxide on growth performance,diarrhea incidence,intestinal morphology and microbial diversity of weaned piglets[J]. Animals, 2024, 14(3):523.

DOI

[3]
MING D X, WANG W H, HUANG C Y, et al. Effects of weaning age at 21 and 28 days on growth performance,intestinal morphology and redox status in piglets[J]. Animals, 2021, 11(8):2169.

DOI

[4]
KO K B, KIM G D, KANG D G, et al. The influences of weaning age and weight on carcass traits and meat quality of pigs[J]. Animal Science Journal, 2015, 86(4):428-434.

DOI PMID

[5]
ZHAO Q, JIANG Z N, LI T, et al. Current status and trends in antimicrobial use in food animals in China,2018-2020[J]. One Health Advances, 2023, 1(1):29.

DOI

[6]
TAN L J, CHENG Y J, LIU G W, et al. Dietary glutamine supplementation enhances growth performance and jejunum development in Kele and large white hybrid weaned piglets[J]. Agriculture, 2025, 15(9):924.

DOI

[7]
LIU T, MA W, WANG J, et al. Dietary protease supplementation improved growth performance and nutrients digestion via modulating intestine barrier, immunological response,and microbiota composition in weaned piglets[J]. Antioxidants, 2024, 13(7):816.

DOI

[8]
CAI L, ZHAO Y, CHEN W N, et al. Effect of an organic acid blend as an antibiotic alternative on growth performance,antioxidant capacity,intestinal barrier function,and fecal microbiota in weaned piglets[J]. Journal of Animal Science, 2024, 102:skae149.

[9]
XIE Q, YANG M, QING D M, et al. Ningxiang pig-derived Lactobacillus reuteri improves the gut health of weaned piglets by regulating intestinal barrier function and cytokine profiles[J]. Scientific Reports, 2025, 15(1):3993.

DOI

[10]
PARK S, SUN S, KOVANDA L, et al. Effects of monoglyceride blend on systemic and intestinal immune responses,and gut health of weaned pigs experimentally infected with a pathogenic Escherichia coli[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):141.

DOI

[11]
LUISE D, CORREA F, CHALVON-DEMERSAY T, et al. Supplementation of mixed doses of glutamate and glutamine can improve the growth and gut health of piglets during the first 2 weeks post-weaning[J]. Scientific Reports, 2022, 12(1):14533.

DOI

[12]
LI Z P, LIU S H, ZHAO Y R, et al. Compound organic acid could improve the growth performance,immunity and antioxidant properties,and intestinal health by altering the microbiota profile of weaned piglets[J]. Journal of Animal Science, 2023, 101:skad196.

[13]
WANG B J, HOU J J, CAO Y D, et al. Dietary isobutyric acid supplementation improves intestinal mucosal barrier function and meat quality by regulating cecal microbiota and serum metabolites in weaned piglets[J]. Frontiers in Veterinary Science, 2025, 12:1565216.

[14]
ROOKE J A, BLAND I M. The acquisition of passive immunity in the new-born piglet[J]. Livestock Production Science, 2002, 78(1):13-23.

DOI

[15]
SINKORA M, BUTLER J E. The ontogeny of the porcine immune system[J]. Developmental and Comparative Immunology, 2009, 33(3):273-283.

DOI PMID

[16]
DING S J, CHENG Y T, AZAD M A K, et al. Developmental changes of immunity and different responses to weaning stress of Chinese indigenous piglets and Duroc piglets during suckling and weaning periods[J]. International Journal of Molecular Sciences, 2022, 23(24):15781.

DOI

[17]
XUN W J, SHI L G, ZHOU H L, et al. Effect of weaning age on intestinal mucosal morphology,permeability,gene expression of tight junction proteins,cytokines and secretory IgA in Wuzhishan mini piglets[J]. Italian Journal of Animal Science, 2018, 17(4):976-983.

DOI

[18]
LEVAST B, DE MONTE M, CHEVALEYRE C, et al. Ultra-early weaning in piglets results in low serum IgA concentration and IL17 mRNA expression[J]. Veterinary Immunology and Immunopathology, 2010, 137(3-4):261-268.

DOI

[19]
WANG M, WANG L X, TAN X, et al. The developmental changes in intestinal epithelial cell proliferation,differentiation,and shedding in weaning piglets[J]. Animal Nutrition, 2022, 9:214-222.

DOI

[20]
HU C H, XIAO K, LUAN Z S, et al. Early weaning increases intestinal permeability,alters expression of cytokine and tight junction proteins,and activates mitogen-activated protein kinases in pigs[J]. Journal of Animal Science, 2013, 91(3):1094-1101.

DOI

[21]
PEARCE S C, MANI V, BODDICKER R L, et al. Heat stress reduces intestinal barrier integrity and favors intestinal glucose transport in growing pigs[J]. PLoS One, 2013, 8(8):e70215.

DOI

[22]
LIU J H, ZHOU M H, XU Q L, et al. Quercetin ameliorates deoxynivalenol-induced intestinal injury and barrier dysfunction associated with inhibiting necroptosis signaling pathway in weaned pigs[J]. International Journal of Molecular Sciences, 2023, 24(20):15172.

DOI

[23]
MAROILLEY T, BERRI M, LEMONNIER G, et al. Immunome differences between porcine ileal and jejunal Peyer’s patches revealed by global transcriptome sequencing of gut-associated lymphoid tissues[J]. Scientific Reports, 2018, 8(1):9077.

DOI

[24]
MAKALA L H, KAMADA T, NISHIKAWA Y, et al. Ontogeny of pig discrete Peyer’s patches:distribution and morphometric analysis[J]. Pathobiology, 2000, 68(6):275-282.

DOI

[25]
FURUKAWA M, ITO S, SUZUKI S, et al. Organogenesis of ileal Peyer’s patches is initiated prenatally and accelerated postnatally with comprehensive proliferation of B cells in pigs[J]. Frontiers in Immunology, 2020, 11:604674.

[26]
BUTLER J E, WEBER P, SINKORA M, et al. Antibody repertoire development in fetal and neonatal piglets Ⅷ.Colonization is required for newborn piglets to make serum antibodies to T-dependent and type 2 T-independent antigens[J]. The Journal of Immunology, 2002, 169(12):6822-6830.

DOI

[27]
SALADRIGAS-GARCÍA M, DURÁN M, D’ANGELO M, et al. An insight into the commercial piglet’s microbial gut colonization:from birth towards weaning[J]. Animal Microbiome, 2022, 4(1):68.

DOI

[28]
LUO Y H, REN W, SMIDT H, et al. Dynamic distribution of gut microbiota in pigs at different growth stages:composition and contribution[J]. Microbiology Spectrum, 2022, 10(3):e0068821.

DOI

[29]
CHEN L M, XU Y S, CHEN X Y, et al. The maturing development of gut microbiota in commercial piglets during the weaning transition[J]. Frontiers in Microbiology, 2017, 8:1688.

DOI PMID

[30]
ZHOU H, SUN J, GE L P, et al. Exogenous infusion of short-chain fatty acids can improve intestinal functions independently of the gut microbiota[J]. Journal of Animal Science, 2020, 98(12):skaa371.

[31]
BEKEBREDE A F, NOORMAN L, KEIJER J, et al. Functional metabolic capacity of pig colonocytes is differentially modulated by fermentable fibre and poorly digestible protein[J]. Animal, 2022, 16(11):100625.

DOI

[32]
CAMPBELL J M, CRENSHAW J D, POLO J. The biological stress of early weaned piglets[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):19.

DOI PMID

[33]
ZHOU M, WU Z C, DENG D H, et al. Effects of taurine on the growth performance, diarrhea,oxidative stress and intestinal barrier function of weanling piglets[J]. Frontiers in Veterinary Science, 2024, 11:1436282.

[34]
ZHU C, YE J L, YANG J, et al. Differential expression of intestinal ion transporters and water channel aquaporins in young piglets challenged with enterotoxigenic Escherichia coli K88[J]. Journal of Animal Science, 2017, 95(12):5240-5252.

DOI

[35]
CHANG S Y, SONG M H, LEE J H, et al. Phytogenic feed additives alleviate pathogenic Escherichia coli-induced intestinal damage through improving barrier integrity and inhibiting inflammation in weaned pigs[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):107.

DOI

[36]
CHEN Y M, GABLER N K, BURROUGH E R. Porcine epidemic diarrhea virus infection induces endoplasmic reticulum stress and unfolded protein response in jejunal epithelial cells of weaned pigs[J]. Veterinary Pathology, 2022, 59(1):82-90.

DOI

[37]
SUN X Y, WANG J, TIAN W J, et al. Porcine epidemic diarrhea virus induces panoptosis in piglet intestinal cells via Z-RNA/ZBP1/ROS pathway-mediated oxidative stress activation[J]. Free Radical Biology and Medicine, 2025, 239:386-405.

DOI

[38]
XU M, WANG S J, LI L X, et al. Secondary infection with Streptococcus suis serotype 7 increases the virulence of highly pathogenic porcine reproductive and respiratory syndrome virus in pigs[J]. Virology Journal, 2010, 7(1):184.

DOI

[39]
LI J N, WANG S N, LI C Y, et al. Secondary Haemophilus parasuis infection enhances highly pathogenic porcine reproductive and respiratory syndrome virus (HP-PRRSV) infection-mediated inflammatory responses[J]. Veterinary Microbiology, 2017, 204:35-42.

DOI

[40]
GABLER N K, KOLTES D, SCHAUMBERGER S, et al. Diurnal heat stress reduces pig intestinal integrity and increases endotoxin translocation[J]. Translational Animal Science, 2018, 2(1):1-10.

DOI PMID

[41]
OH H K, CHOI H B, JU W S, et al. Effects of space allocation on growth performance and immune system in weaning pigs[J]. Livestock Science, 2010, 132(1/2/3):113-118.

DOI

[42]
HONG Q H, LI X, LIN Q, et al. Resveratrol improves intestinal morphology and anti-oxidation ability in deoxynivalenol-challenged piglets[J]. Animals, 2022, 12(3):311.

DOI

[43]
TANG M, YUAN D X, LIAO P. Berberine improves intestinal barrier function and reduces inflammation,immunosuppression,and oxidative stress by regulating the NF-κB/MAPK signaling pathway in deoxynivalenol-challenged piglets[J]. Environmental Pollution, 2021, 289:117865.

[44]
ZHANG H Y, XIANG X, WANG C Y, et al. Different effects of acute and chronic oxidative stress on the intestinal flora and gut-liver axis in weaned piglets[J]. Frontiers in Microbiology, 2024, 15:1414486.

[45]
JIN S S, WU J, WANG C Y, et al. Aspartate metabolism-driven gut microbiota dynamics and rip-dependent mitochondrial function counteract oxidative stress[J]. Advanced Science, 2025, 12(11):2404697.

DOI

[46]
XIANG X, WANG H F, ZHOU W T, et al. Glutathione protects against paraquat-induced oxidative stress by regulating intestinal barrier, antioxidant capacity,and car signaling pathway in weaned piglets[J]. Nutrients, 2023, 15(1):198.

DOI

[47]
HONG C M, HUANG Y J, CAO S T, et al. Accurate models and nutritional strategies for specific oxidative stress factors:does the dose matter in swine production?[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):11.

DOI

[48]
HAO Y, XING M J, GU X H. Research progress on oxidative stress and its nutritional regulation strategies in pigs[J]. Animals, 2021, 11(5):1384.

DOI

[49]
HE L Q, DING Y Q, ZHOU X H, et al. Serine signaling governs metabolic homeostasis and health[J]. Trends in Endocrinology & Metabolism, 2023, 34(6):361-372.

[50]
JIANG X, LI D, CHEN M L, et al. Dietary glycyl-glutamine supplementation improves growth,immunity,antioxidant capacity,and apparent digestibility of weaned piglets[J]. Animals, 2025, 15(17):2573.

DOI

[51]
WU M M, XIAO H, REN W K, et al. Therapeutic effects of glutamic acid in piglets challenged with deoxynivalenol[J]. PLoS One, 2014, 9(7):e100591.

DOI

[52]
CHEN S, WU X, DUAN J L, et al. Low-protein diets supplemented with glutamic acid or aspartic acid ameliorate intestinal damage in weaned piglets challenged with hydrogen peroxide[J]. Animal Nutrition, 2021, 7(2):356-364.

DOI PMID

[53]
ZHOU X H, ZHANG Y M, WU X, et al. Effects of dietary serine supplementation on intestinal integrity,inflammation and oxidative status in early-weaned piglets[J]. Cellular Physiology and Biochemistry, 2018, 48(3):993-1002.

DOI

[54]
SU W P, ZHANG H, YING Z X, et al. Effects of dietary L-methionine supplementation on intestinal integrity and oxidative status in intrauterine growth-retarded weanling piglets[J]. European Journal of Nutrition, 2018, 57(8):2735-2745.

DOI

[55]
SCHREGEL J, SCHULZE HOLTHAUSEN J, SCIASCIA Q L, et al. Acute and persistent effects of oral glutamine supplementation on growth,cellular proliferation,and tight junction protein transcript abundance in jejunal tissue of low and normal birthweight pre-weaning piglets[J]. PLoS One, 2024, 19(1):e0296427.

DOI

[56]
YIN J, LIU M F, REN W K, et al. Effects of dietary supplementation with glutamate and aspartate on diquat-induced oxidative stress in piglets[J]. PLoS One, 2015, 10(4):e0122893.

DOI

[57]
HE L Q, LONG J, ZHOU X H, et al. Serine is required for the maintenance of redox balance and proliferation in the intestine under oxidative stress[J]. The FASEB Journal, 2020, 34(3):4702-4717.

DOI

[58]
ZHANG H, CHEN Y P, LI Y, et al. L-threonine improves intestinal mucin synthesis and immune function of intrauterine growth-retarded weanling piglets[J]. Nutrition, 2019, 59:182-187.

DOI PMID

[59]
KOO B, CHOI J, YANG C B, et al. Diet complexity and L-threonine supplementation:effects on growth performance,immune response,intestinal barrier function,and microbial metabolites in nursery pigs[J]. Journal of Animal Science, 2020, 98(5):skaa125.

[60]
WANG L, JIN L, ZHANG L L, et al. Exploring the link between mucin 2 and weaning stress-related diarrhoea in piglets[J]. International Journal of Molecular Sciences, 2025, 26(2):599.

DOI

[61]
WU L, LIAO P, HE L Q, et al. Dietary L-arginine supplementation protects weanling pigs from deoxynivalenol-induced toxicity[J]. Toxins, 2015, 7(4):1341-1354.

DOI

[62]
ZHENG P, YU B, HE J, et al. Protective effects of dietary arginine supplementation against oxidative stress in weaned piglets[J]. British Journal of Nutrition, 2013, 109(12):2253-2260.

DOI

[63]
DUAN J L, YIN J, REN W K, et al. Dietary supplementation with L-glutamate and L-aspartate alleviates oxidative stress in weaned piglets challenged with hydrogen peroxide[J]. Amino Acids, 2016, 48(1):53-64.

DOI

[64]
WANG L G, JIANG L W, CHU Y Y, et al. Dietary taurine improves growth performance and intestine health via the GSH/GSSG antioxidant system and Nrf2/ARE signaling pathway in weaned piglets[J]. Antioxidants, 2023, 12(10):1852.

DOI

[65]
SONG Z H, TONG G, XIAO K, et al. L-cysteine protects intestinal integrity,attenuates intestinal inflammation and oxidant stress,and modulates NF-κB and Nrf2 pathways in weaned piglets after LPS challenge[J]. Innate Immunnity, 2016, 22(3):152-161.

[66]
WU S N, WANG L, CUI B L, et al. Effects of vitamin A on growth performance,antioxidants,gut inflammation,and microbes in weaned piglets[J]. Antioxidants, 2023, 12(12):2049.

DOI

[67]
HU Y H, ZHANG L, ZHANG Y, et al. Effects of starch and gelatin encapsulated vitamin A on growth performance,immune status and antioxidant capacity in weaned piglets[J]. Animal Nutrition, 2020, 6(2):130-133.

DOI

[68]
ZHOU X J, ZOU Y W, XU Y H, et al. Dietary supplementation of 25-hydroxyvitamin D3 improves growth performance,antioxidant capacity and immune function in weaned piglets[J]. Antioxidants, 2022, 11(9):1750.

DOI

[69]
SILVA-GUILLEN Y V, ARELLANO C, BOYD R D, et al. Growth performance,oxidative stress and immune status of newly weaned pigs fed peroxidized lipids with or without supplemental vitamin E or polyphenols[J]. Journal of Animal Science and Biotechnology, 2020, 11(1):22.

DOI

[70]
REY A I, LÓPEZ-BOTE C J, LITTA G. Effects of dietary vitamin e (DL-α-tocopheryl acetate) and vitamin C combination on piglets oxidative status and immune response at weaning[J]. Journal of Animal and Feed Sciences, 2017, 26(3):226-235.

[71]
ZHOU H B, HUANG X Y, BI Z, et al. Vitamin A with L-ascorbic acid sodium salt improves the growth performance, immune function and antioxidant capacity of weaned pigs[J]. Animal, 2021, 15(2):100133.

DOI

[72]
MAINARDI E, CORINO C, ROSSI R. The effect of vitamins on the immune systems of pigs[J]. Animals, 2024, 14(14):2126.

DOI

[73]
SMOŁUCHA G, STEG A, OCZKOWICZ M. The role of vitamins in mitigating the effects of various stress factors in pigs breeding[J]. Animals, 2024, 14(8):1218.

DOI

[74]
STEFANACHE A, LUNGU I I, BUTNARIU I A, et al. Understanding how minerals contribute to optimal immune function[J]. Journal of Immunology Research, 2023, 2023(1):3355733.

[75]
TANG X P, XIONG K N, ZENG Y, et al. The mechanism of zinc oxide in alleviating diarrhea in piglets after weaning:a review from the perspective of intestinal barrier function[J]. International Journal of Molecular Sciences, 2024, 25(18):10040.

DOI

[76]
NGANGA Z W, TOUS N, BALLESTER M, et al. Impact of zinc oxide on gut health,immunity,and growth in weaned piglets: exploring potential modes of action[J]. Frontiers in Veterinary Science, 2025, 12:1645900.

[77]
DAI F, ZHAO F, HUANG X, et al. Effects of replacing zinc oxide with different levels of zinc lactate on growth performance,serum indexes,intestinal health and gut microbiota in weaned piglets[J]. Frontiers in Microbiology, 2025, 16:1622700.

[78]
BIKKER P, JONGBLOED A W, VAN BAAL J. Dose-dependent effects of copper supplementation of nursery diets on growth performance and fecal consistency in weaned pigs[J]. Journal of Animal Science, 2016, 94(suppl_3):181-186.

[79]
XU W W, ZHOU M, YANG Z K, et al. Organic trace elements enhance growth performance,antioxidant capacity,and gut microbiota in finishing pigs[J]. Frontiers in Veterinary Science, 2024, 11:1517976.

[80]
EDMUNDS C E, SEIDEL D S, WELCH C B, et al. The effect of varying dietary manganese and selenium levels on the growth performance and manganese-superoxide dismutase activity in nursery pigs[J]. Livestock Science, 2022, 265:105100.

[81]
EDMUNDS C E, WELCH C B, LOURENCO J M, et al. The effects of dietary manganese and selenium on growth and the fecal microbiota of nursery piglets[J]. Veterinary Sciences, 2023, 10(11):650.

DOI

[82]
LIU Y, WU A M, YU B, et al. The influence of iron nutrition on the development of intestine and immune cell divergency in neonatal pigs[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):111.

DOI PMID

[83]
DING H X, YU X N, CHEN L J, et al. Tolerable upper intake level of iron damages the intestine and alters the intestinal flora in weaned piglets[J]. Metallomics, 2020, 12(9):1356-1369.

DOI PMID

[84]
SUN L M, YU B, LUO Y H, et al. Effects of different sources of iron on growth performance,immunity,and intestinal barrier functions in weaned pigs[J]. Agriculture, 2022, 12(10):1627.

DOI

[85]
LI Y, HANSEN S L, BORST L B, et al. Dietary iron deficiency and oversupplementation increase intestinal permeability, ion transport, and inflammation in pigs[J]. The Journal of Nutrition, 2016, 146(8):1499-1505.

DOI

[86]
TIAN C Y, ZHANG X F, XU Y C, et al. Intramuscular iron supplementation enhances intestinal barrier function in weaned piglets challenged with enterotoxigenic Escherichia coli[J]. Frontiers in Cellular and Infection Microbiology, 2025, 15:1553639.

[87]
QI K K, DENG B, MA Q, et al. Effects of a manganese complex with lysine and glutamic acid on growth performance,manganese deposition,and emission,antioxidant capacity and metacarpal strength in weaned piglets[J]. Journal of Animal Science, 2024, 102:skae146.

[88]
EVVARD J M. Iodine deficiency symptoms and their significance in animal nutrition and pathology[J]. Endocrinology, 1928, 12(5):539-590.

DOI

[89]
TUCKER A L, FARZAN A, CASSAR G, et al. Effect of in-water iodine supplementation on weight gain,diarrhea and oral and dental health of nursery pigs[J]. Canadian Journal of Veterinary Research, 2011, 75(4):292-297.

[90]
WANG W K, CHEN D W, YU B, et al. Effects of dietary inulin supplementation on growth performance,intestinal barrier integrity and microbial populations in weaned pigs[J]. British Journal of Nutrition, 2020, 124(3):296-305.

DOI

[91]
ZHANG Z Y, ZHANG G, ZHANG S, et al. Fructooligosaccharide reduces weanling pig diarrhea in conjunction with improving intestinal antioxidase activity and tight junction protein expression[J]. Nutrients, 2022, 14(3):512.

DOI

[92]
UDDIN M K, MAHMUD M R, HASAN S, et al. Dietary micro-fibrillated cellulose improves growth,reduces diarrhea,modulates gut microbiota,and increases butyrate production in post-weaning piglets[J]. Scientific Reports, 2023, 13(1):6194.

DOI

[93]
ARANTES A P V, CAMBITO DE PAULA V R, DIB SALEH M A, et al. Dietary prebiotic combination improves immunological and hematological parameters in weaned pigs[J]. Bioactive Carbohydrates and Dietary Fibre, 2025, 33:100473.

[94]
RAJKOVIĆ E, SCHWARZ C, KAPSAMER S B, et al. Evaluation of a dietary grape extract on oxidative status,intestinal morphology,plasma acute-phase proteins and inflammation parameters of weaning piglets at various points of time[J]. Antioxidants, 2022, 11(8):1428.

DOI

[95]
WEI X, LI L, YAN H, et al. Grape seed procyanidins improve intestinal health by modulating gut microbiota and enhancing intestinal antioxidant capacity in weaned piglets[J]. Livestock Science, 2022, 264:105066.

[96]
BONETTI A, TUGNOLI B, GHISELLI F, et al. A microencapsulated blend of botanicals supports weaning piglets during a lipopolysaccharide challenge by modulating liver inflammation and intestinal integrity[J]. Journal of Animal Science, 2024, 102:skae277.

[97]
CHEN X, SONG W, XIONG P, et al. Effects of microencapsulated plant essential oils on growth performance,immunity,and intestinal health of weaned Tibetan piglets[J]. Frontiers in Veterinary Science, 2024, 11:1456181.

[98]
LEE J, KIM J W, HALL H, et al. Effect of dietary organic acids supplementation on growth performance,nutrient digestibility, and gut morphology in weaned pigs[J]. Canadian Journal of Animal Science, 2021, 102(2):255-265.

DOI

[99]
CHRISTENSEN B, HUBER L A. The effect of creep feed composition and form on pre- and post-weaning growth performance of pigs and the utilization of low-complexity nursery diets[J]. Translational Animal Science, 2021, 5(4):txab211.

[100]
BOSTON T E, WANG F, LIN X, et al. Gruel creep feeding accelerates growth and alters intestinal health of young pigs[J]. Animals, 2022, 12(18):2408.

DOI

[101]
DUMAS G, LO VERSO L, GUAY F. Effect of creep and post-weaning feeding composition on piglets’ intestinal health and post-weaning growth according to their creep feed consumption status[J]. Canadian Journal of Animal Science, 2025, 105:1-15.

[102]
HALD M, BRUUN T S, PEDERSEN T F, et al. Review:strategies to stimulate piglet creep feed intake before weaning[J]. Livestock Science, 2025, 302:105840.

[103]
YU S J, MORRIS A, KAYAL A, et al. Pioneering gut health improvements in piglets with phytogenic feed additives[J]. Applied Microbiology and Biotechnology, 2024, 108(1):142.

DOI PMID

[104]
PIÑEIRO C, MANSO A, MANZANILLA E G, et al. Influence of sows’ parity on performance and humoral immune response of the offspring[J]. Porcine Health Management, 2019, 5(1):1.

DOI

[105]
SZABÓ C, ORTEGA A D S V, LUGATA J K, et al. Factors affecting the Ig content of sow’s colostrum:a systematic review and Meta-analysis[J]. Agriculture, 2025, 15(6):641.

DOI

Outlines

/