REVIEW

Recent Advances on Mechanisms of Lactoferrin’s Antioxidant and Anti-Inflammatory Responses

  • ZHANG Yue ,
  • YAN Sumei , * ,
  • MENG Fanzhu ,
  • ZHAO Yanli
Expand
  • Key Laboratory of Animal Nutrition and feed science at Universities of Inner Mongolia Autonomous Region, College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
* professor, E-mail:

Received date: 2025-07-09

  Online published: 2026-01-13

Abstract

Lactoferrin (LTF) is a multifunctional glycoprotein mainly present in milk. It can not only directly exert antioxidant effects by binding iron ions and other heavy metal ions to reduce the production of reactive oxygen species (ROS), but also activate the body’s endogenous antioxidant defense system by regulating redox-sensitive transcription factors, thereby promoting the expression of antioxidant enzymes and alleviating oxidative damage. This review summarizes the molecular biological characteristics of LTF, the mechanisms of its antioxidant and anti-inflammatory responses and its applications in livestock and poultry production, aiming to provide a theoretical reference for further clarifying the application mechanism of LTF in the prevention and treatment of oxidative damage.

Cite this article

ZHANG Yue , YAN Sumei , MENG Fanzhu , ZHAO Yanli . Recent Advances on Mechanisms of Lactoferrin’s Antioxidant and Anti-Inflammatory Responses[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 101 -110 . DOI: 10.12418/CJAN2026.009

氧化应激是指机体内活性氧(reactive oxygen species,ROS)或活性氮(reactive nitrogen species,RNS)过量时对细胞、组织及机体造成损伤的状态。正常情况下,ROS与RNS在机体代谢过程中维持动态平衡,而当氧化物质累积过多或抗氧化系统功能失调时,便会引发氧化应激,进而诱发一系列疾病[1]。因此,提高机体自身抗氧化能力、减轻氧化损伤、防治氧化应激相关疾病具有重要意义。乳铁蛋白(lactoferrin,LTF)是哺乳动物先天免疫系统中的一种多功能非血红素铁结合糖蛋白,由黏膜上皮细胞产生,广泛存在于哺乳动物的乳汁、尿液、泪液等外分泌液中,在中性粒细胞的次级颗粒中也有发现,其中以乳汁中的含量最高[2]。牛乳腺上皮细胞产生的LTF会直接分泌至乳汁中,牛初乳中的LTF含量仅次于酪蛋白,是常乳的数倍至数十倍。驴乳中的LTF含量更高,占驴乳蛋白的2.3%~2.9%,约为牛乳和羊乳的10倍,这可能是驴乳在免疫调节和抗菌功能方面表现出更强生物活性的原因[3-4]。LTF作为铁转运蛋白家族中负责铁运输与结合的蛋白之一,具有极强的铁螯合能力,且与转铁蛋白(transferrin,TF)高度同源,但其对铁的亲和力常数比TF高300倍,同时能在较低pH环境中稳定保留铁[5]。近年来许多研究表明,LTF在抗氧化、抗菌、抗炎和免疫调节方面发挥着重要作用。Khan等[6]指出,富含LTF的驴乳因其较强的抗氧化活性,能够有效增强人体的抗氧化能力,其乳制品有望在常规治疗中作为辅助佐剂,用于治疗心血管疾病、代谢紊乱及维持肠道健康等,是极具潜力的功能性乳制品。本文主要综述了LTF的分子生物学特性、抗氧化与抗炎症反应作用机制及其在畜禽生产中的应用,旨在为深入阐明LTF在预防和缓解氧化损伤方面的机制以及开发新型LTF功能性产品提供参考。

1 LTF的分子结构与理化性质

1.1 LTF的分子结构

LTF是一种由单一多肽链组成的糖蛋白,其分子包含2个铁结合位点,能够与三价铁离子(Fe3+)紧密结合,在机体内参与铁的运输与代谢,协助TF维持机体铁平衡[7]。铁转运蛋白家族中负责铁运输与结合的蛋白包括TF和LTF,二者的主要作用分别是调控机体内铁循环和局部免疫。TF大多分布于血液中,是主要的铁运输蛋白,负责将Fe3+运输至需铁组织;而LTF结合铁的能力更强,能够抑制细菌生长,参与先天免疫反应[8]。LTF是乳清蛋白的重要组成部分,在生理条件下以单体形式存在,其三级结构是由2个对称且高度同源的叶状结构域[N端叶(N-lobe)和C端叶(C-lobe)]通过柔性铰链区连接而成[9]。X射线晶体学研究发现,每个LTF分子能够可逆地结合2个Fe3+,结合位点位于N-lobe和C-lobe的2个亚结构域间的裂隙处,形成稳定的八面体配位结构[7,10]。根据铁饱和度,LTF可分为铁饱和度低于5%的脱铁乳铁蛋白(apo-lactoferrin,apo-LTF)以及铁饱和度高于85%的铁饱和乳铁蛋白(holo-lactoferrin,holo-LTF)[11]。在结合Fe3+前后,LTF会发生构象变化:铁结合状态下,holo-LTF结构域呈闭合状态,形成稳定复合物;而当配位结构被破坏或与相应的细胞受体结合后,其结构域开放,释放Fe3+,转变为apo-LTF[12]。不同物种来源的LTF同源性较高,研究发现,牛与人的LTF在一、二级结构上高度相似,这可能是二者在理化性质和生物活性等方面均有较高相似性的原因之一[13]。综上可知,LTF作为乳清蛋白的重要组分,是一种含有2个铁结合位点、与Fe3+的强结合力受到铁饱和度影响的糖蛋白,可参与机体铁循环调控及局部免疫调节。

1.2 LTF的理化性质

在60~70 ℃短时处理(如巴氏杀菌)条件下,乳制品中的LTF结构相对稳定,但长时间高温(>80 ℃)处理会导致其不可逆变性,丧失铁结合能力。巴氏杀菌后,大部分LTF仍能维持活性,这一特性部分源于分子中的二硫键,该结构可显著增强LTF对高温、酸碱环境及蛋白酶水解作用的抵抗能力。与人LTF相比,牛LTF缺失1对铰链区二硫键和1对跨叶二硫键,这种三级结构的变化导致其构象变化更具灵活性,但稳定性略差于人LTF[12,14]。LTF对胰蛋白酶、胃蛋白酶具有一定抗性,但在低pH环境下LTF可被胃蛋白酶水解,进而暴露其阳离子抗菌肽结构域并形成短肽。这些短肽具有抗菌、抗炎、抗氧化和免疫调节等功能,其抗炎活性甚至优于LTF本身,因此被广泛应用于新型功能性食品添加剂及医药产品的开发[15]。综上可知,LTF具有较强的结构稳定性,分子中的二硫键是其抵抗高温、酸碱环境及蛋白酶水解的关键;而其在酸性环境中水解产生的短肽,因暴露阳离子抗菌肽结构域,展现出比LTF本身更优异的抗菌、抗炎及抗氧化活性。

2 LTF对氧化应激与炎症反应的减缓作用

2.1 氧化应激的发生机制

在线粒体合成ATP的过程中,氧气(O2)在电子传输链中通过氧化磷酸化被还原为水(H2O),同时释放出大量超氧阴离子,因此线粒体是细胞内ROS和过氧化氢(H2O2)的主要来源场所[16]。ROS和一氧化氮(NO)可作为关键信号分子参与机体代谢与免疫应答,但二者过量累积会诱发氧化应激;在持续氧化应激状态下,ROS与NO反应生成高毒性的过氧亚硝基阴离子,其表现出比羟基自由基(·OH)更高的氧化能力,进一步引发蛋白质硝化、脂质过氧化及DNA损伤,推动氧化应激级联反应放大[17]。在细胞水平上,氧化应激的表现包括但不限于生物膜脂质过氧化、蛋白质折叠和加工错误,甚至可诱导DNA突变,这些分子层面的修饰又与多种炎症和疾病的发生密切相关[18]。这一过程往往通过激活信号通路进行,触发促炎因子的转录,形成“氧化-炎症-疾病-氧化”的恶性循环,这也是代谢综合征、神经退行性疾病等的核心发病机制[19-20]。例如,核因子-κB(nuclear factor-κB,NF-κB)信号通路不仅响应氧化应激产生炎症因子,还可反向调控线粒体内ROS的生成,形成氧化应激的正反馈回路[21]。综上可知,机体一旦产生持续的氧化应激,可诱发生物膜脂质过氧化与DNA损伤,驱动氧化应激级联反应,并形成“氧化-炎症-疾病-氧化”的恶性循坏。

2.2 LTF减缓氧化应激与炎症反应的途径

在人、鼠、猪等哺乳动物方面的多项研究证实,LTF具有减缓氧化应激和炎症反应的作用。它能够抑制细胞的脂质过氧化、异常增殖和DNA损伤,促进抗氧化酶活性升高,抑制炎症因子产生,并增强对ROS和RNS自由基的清除能力,因此在减轻与许多疾病相关的氧化应激和炎症反应中发挥重要作用。研究表明,LTF能够减缓四氯化碳诱导的小鼠肝脏炎症,逆转抗氧化应激标志物超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)活性的下降以及丙二醛(malondialdehyde,MDA)含量的升高,抑制炎症因子白细胞介素-1β(interleukin-1β,IL-1β)和白细胞介素-10(interleukin-10,IL-10)基因表达的上调[22]。此外,LTF对大鼠脓毒症引发的急性肺损伤及紫杉醇诱导小鼠内质网氧化应激引起的肝脏炎症均有抑制作用,能减少脂质过氧化物与炎症标志物产生,提升SOD、GPx及过氧化氢酶(catalase,CAT)活性[23-24]。在细胞水平上,LTF能够抑制脂多糖(lipopolysaccharides,LPS)诱导的小鼠RAW264.7细胞炎症反应,减少炎症细胞因子生成,并抑制Toll样受体4(Toll-like receptor 4,TLR4)/髓样分化因子88(myeloid differentiation factor 88,MyD88)/NF-κB通路活性[25];同时能减轻LPS诱导的猪肠上皮细胞的炎症反应与屏障损伤,上调GPx的活性和核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)的蛋白表达,减少ROS和MDA的生成[26]。LTF还对多种癌细胞表面过表达的低密度脂蛋白受体和转铁蛋白受体具有高亲和力,因而表现出强效肿瘤靶向抑制作用。在乳腺癌小鼠模型中,LTF可增强抗肿瘤作用,并抑制NF-κB p65与肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)的基因表达[27]。LTF对三价铁盐和抗坏血酸诱导的脂质过氧化也具有抑制作用,有助于保护中性粒细胞、炎症灶和分泌物免受金属离子依赖的氧化损伤[28]。以铁还原/抗氧化能力、NO清除能力、总抗氧化能力(total antioxidant capacity,T-AOC)和DNA损伤程度为评价指标的研究显示,作为乳中主要铁结合蛋白,LTF在体外具有抑制结肠癌细胞增殖、减轻DNA损伤及抗氧化的潜力,可用于缓解如肝炎、癌症等多种疾病相关的氧化应激[29]

3 LTF抗氧化与抗炎症反应的作用机制

3.1 LTF螯合Fe3+抑制芬顿反应(FTR)

LTF所具有的抗氧化活性与其分子结构中铁结合域的铁结合能力呈正相关。FTR是指H2O2在游离二价铁离子(Fe2+)的存在下生成强氧化性·OH,进而产生更多ROS的过程。LTF通过其N-lobe和C-lobe的2个铁结合结构域中的氨基酸残基捕获游离Fe3+,从上游阻断FTR的发生;同时,它还能通过静电作用吸附带负电荷的自由基,并通过氢键稳定氧化中间产物,这些特性共同构成了LTF抗氧化的结构基础[10,30]。这种结构与功能的紧密结合,使LTF在生理pH范围内能够保持高效的抗氧化活性。LTF不仅能直接中和ROS和RNS,还可通过调节金属离子稳态、激活内源性抗氧化系统及保护生物膜完整性,实现系统性抗氧化防御。值得注意的是,N-lobe铁结合位点对Fe3+的亲和力略高于C-lobe,这一差异与其功能分工有关。N-lobe的阳离子区域可直接结合LPS,破坏细菌膜完整性,该特性已被证实与LTF的抗菌及抗氧化活性相关。其主要功能为竞争性结合环境中的游离铁,通过铁剥夺不仅能抑制细菌生长,可以阻断FTR,减少·OH的生成,进而发挥抗氧化作用[31-32]。研究表明,在配方奶粉或母乳中添加铁补剂会增加乳中自由基的产生和MDA等脂质过氧化物的生成,而这些影响会随着87 μmol/L重组人LTF的添加而减弱,说明LTF在缓解氧化损伤方面具有重要作用[33]。此外,人LTF表面的氨基酸簇[如精氨酸121(Arg121)~精氨酸210(Arg210)]也可通过调控铁结合起到抗氧化作用。分子动力学模拟研究发现,Arg121和Arg210在LTF结构稳定性中起到重要作用,其中Arg121是稳定人LTF的N-lobe中Fe3+的关键氨基酸,它可稳定活性结合位点的碳酸根离子(CO 3 2 -),进而调控铁的结合与释放,该氨基酸缺失会直接破坏人LTF的铁结合能力[34]。铁死亡是一种铁依赖性脂质过氧化和ROS诱导的调节性细胞死亡形式,当铁过载触发FTR时,细胞开始发生铁死亡,导致ROS和脂质过氧化物在细胞中产生并不断累积[35]。磷脂作为脂质双分子层的基本结构成分,是铁死亡发生的主要底物。因此,ROS的大量堆积会引发铁依赖性脂质过氧化,而脂质过氧化的增强又会激活多种炎症信号通路产生炎症因子,进而加剧细胞氧化应激与脂质过氧化[36]。Xiao等[37]研究发现,在小鼠神经元细胞的培养中沉默LTF基因或在中性粒细胞的培养中添加LTF中和抗体,均会增加细胞的铁死亡;而添加LTF能够成功地降低细胞内Fe2+、Fe3+和MDA含量,有效减缓神经功能的缺损。铁死亡与炎症相关信号通路的活性密切相关。研究发现,在小鼠平滑肌细胞铁死亡模型中,NF-κB p65磷酸化水平显著升高,而抑制铁死亡后,NF-κB p65磷酸化水平降低;RNA测序分析表明,铁死亡与炎症反应之间存在正反馈调节[38]。由此可见,LTF通过螯合Fe3+抑制FTR及减少ROS的释放,进而抑制铁死亡和炎症信号通路的激活,是其减少自由基对细胞的破坏及增强抗氧化酶活性,最终发挥抗氧化与抗炎症反应作用的主要途径之一。此外,LTF不仅调节体内铁的分布与利用,还可通过与细菌、真菌等病原微生物竞争性结合内环境中的铁,抑制其生长与繁殖,起到抗菌和抗炎作用[39]。LTF还能够直接破坏细菌的细胞膜结构,并通过调节多种免疫细胞功能及影响炎症因子与抗氧化酶的分泌,在机体免疫应答中发挥重要作用[40-41]

3.2 LTF分子的表面活性基团和糖基化修饰介导抗氧化与抗炎症反应

LTF的抗氧化活性与其分子表面的活性基团及糖基化修饰密切相关。LTF的C-lobe不仅能螯合Fe3+,还可识别并结合细胞表面受体,进而介导内吞作用与信号转导,激活抗炎信号通路,并实现组织特异性铁运输,这些功能在帕金森和疟疾等疾病的治疗中显示出重要作用[30,32]。糖基化修饰对LTF的结构稳定性、生物活性及功能多样性具有关键作用。LTF的糖链能够介导受体识别与细胞相互作用,其被宿主细胞表面受体识别后,能进一步促进细胞内吞作用或信号传递[42]。例如,LTF通过与肠道上皮细胞表面受体结合,可被细胞摄取和释放,进而增强Fe3+的跨膜转运效率,调控肠道铁吸收[43]。多项研究证实,LTF的糖链还能与树突状细胞、巨噬细胞等免疫细胞表面受体结合,调控多种炎症因子及ROS的分泌,从而调节机体抗氧化和免疫功能[30,41]。LTF的等电点为8.5~9.0,高于多数蛋白质,因此在生理pH下LTF蛋白表面带有大量的强正电荷,有利于其与带负电的结构(如细菌细胞膜、·OH和宿主细胞受体)结合,进而介导抗菌、抗氧化及免疫调节功能[30]
除铁螯合作用外,LTF还可通过其氧化还原活性中心直接与ROS相互作用。Ogasawara等[44]的体外试验表明,LTF能够通过降解自身的方式与·OH和超氧自由基阴离子等直接作用,从而清除ROS,减少自由基对机体的损伤。因此,LTF不仅通过螯合Fe3+抑制ROS的释放,还能直接作为ROS的清除剂,发挥对细胞的保护作用,这种双重作用使其成为防治氧化应激相关疾病的一个潜在有力工具。

3.3 LTF螯合其他游离金属离子减缓氧化应激

LTF不仅在铁代谢过程中发挥重要的抗氧化作用,其与其他游离金属离子的结合同样具有重要的生理意义,尤其是铜离子(Cu2+)和锌离子(Zn2+)等二价金属离子[9]。Cu2+和Zn2+作为生物体内重要的过渡金属离子,是铜锌依赖型超氧化物歧化酶等多种抗氧化酶的活性中心,以辅因子形式参与细胞和组织的氧化还原平衡的调节,在细胞的抗氧化、代谢和机体生长发育等方面发挥重要作用[45]。但是与Fe2+类似,Cu2+和Zn2+的过量累积会通过FTR及相关氧化还原反应生成具有极高活性的ROS和·OH,并导致机体内抗氧化剂的大量消耗,进一步加剧氧化应激[46]。氧化应激已被证实是多种疾病发生发展的核心诱因之一,而LTF可通过螯合机体内过量的重金属离子,降低其在细胞内的含量与活性,从源头减少自由基生成,进而发挥抗氧化功效[11]。这种螯合作用不仅可以降低自由基含量,还有助于维持抗氧化酶的正常功能。有研究发现,在大鼠饲粮中添加汞会显著提高其肝脏和肾脏组织中MDA、NO和ROS含量,而口服400 mg/(kg·d) LTF可有效缓解汞诱导的氧化应激与脂质过氧化,显著降低肝脏和肾脏组织中MDA含量与CAT活性,同时显著提高T-AOC[47]。小鼠巨噬细胞的体外试验也表明,10 μg/mL的Cu-LTF复合体能够显著抑制细胞中NO的生成,同时可高效清除ROS,及时缓解氧化应激[48]。这些发现进一步证实了LTF可以通过螯合除Fe3+外的Cu2+、Zn2+等其他游离金属离子,抑制FTR和铁死亡,进而减轻氧化损伤。

3.4 LTF通过调节信号通路激活内源性抗氧化防御系统

近年来大量研究表明,LTF的抗氧化作用不仅体现为直接清除ROS及通过螯合金属离子抑制ROS生成,其还能通过调节多条信号通路,降低炎症因子的表达与分泌,促进内源性抗氧化酶的转录及活性提升,从而有效增强机体抗氧化能力。Nrf2是一种关键的氧化还原敏感转录因子,在静息状态下,Nrf2与Kelch样环氧氯丙烷相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)结合形成复合体,通过泛素化-蛋白酶体途径被降解[49];在氧化应激条件下,Nrf2与Keap1解离并转移至细胞核内,与抗氧化反应元件(antioxidant response element,ARE)结合,启动下游抗氧化酶的转录,从而维持细胞内氧化还原稳态[50]。研究发现,在乙醇损伤的大鼠肝细胞模型中添加400 μg/mL LTF,能够通过促进Nrf2核移位减轻细胞损伤;且与损伤组相比,添加LTF后ROS含量降低了50%,细胞内GPx、SOD、CAT活性和Nrf2基因的表达均显著提高[49]。值得注意的是,不同铁饱和度LTF对Keap1/Nrf2通路的激活能力存在差异:人apo-LTF能够通过促进小鼠机体内促红细胞生成素的生成,诱导Nrf2的核转位,增强Nrf2依赖性基因的转录,而人holo-LTF则不能激活该通路[11]。由此可见,LTF可通过抑制Keap1与Nrf2的结合,促进Nrf2核转位并激活其功能,进而上调抗氧化酶表达,发挥抗氧化作用。
NF-κB是炎症反应中的重要转录因子,在静息状态下被隔离在细胞质中,当细胞受到炎症刺激时,NF-κB从细胞质中被释放并转位入核,激活诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)等下游炎症基因转录,进而促进炎症反应[51]。本课题组前期研究发现,在奶牛乳腺上皮细胞中沉默GPx1基因会增强NF-κB通路活性,导致NO过量生成及抗氧化功能下降[52]。与对Nrf2的激活作用相反,LTF能够抑制NF-κB信号通路,从而发挥抗炎效应。Habib等[53]研究发现,在小鼠饲粮中添加300 mg/(kg·d) LTF可显著下调其肾脏、肺脏组织中NF-κB p65和IL-1β的表达。在LPS诱导牛乳腺上皮细胞损伤前,添加200 μg/mL LTF进行预保护,可以通过下调IL-1β、白细胞介素-8(IL-8)、TNF-α和白细胞介素-6(IL-6)的表达缓解LPS诱导的炎症,同时降低NF-κB p65和MAPK p38信号通路的磷酸化水平,抑制NF-κB信号通路,有效缓解炎症反应[54]
此外,一些研究也发现,LTF进入机体后在消化道中可被降解为小分子肽,因此其在减缓氧化应激与炎症反应中的生物效应,可能部分来自其水解产物而非完整的LTF分子。LTF在生理pH下较为稳定,但在酸性环境中能够被胃蛋白酶、胰蛋白酶等特异性蛋白酶部分水解形成短肽,这些短肽的抗炎与抗氧化活性甚至优于LTF本身[15,52]。相关研究表明,给4日龄仔猪口服2.0×10¹⁰ CFU/d LTF胃蛋白酶水解肽,能够显著增加小肠黏膜中Nrf2蛋白的表达,并增强黏膜中SOD、CAT和GPx的活性[55];在LPS诱导小鼠巨噬细胞损伤模型中添加水解牛LTF或人LTF得到的肽制剂,均能够有效缓解LPS引起的NO累积,显著降低超氧自由基阴离子含量[56];LTF水解肽还可通过下调NF-κB基因的表达显著抑制宫颈癌细胞增殖[57];在人外周血单核细胞培养体系中添加1 μg/mL胃蛋白酶水解牛LTF得到的肽制剂,能显著提高干扰素-α的表达水平[24];而在LPS诱导损伤的猪肠上皮细胞模型中,LTF胃蛋白酶水解肽可通过抑制NF-κB p65核移位,降低NF-κB p65磷酸化水平,下调IL-1β、IL-6和TNF-α蛋白的表达[55]。综上所述,LTF及其水解产物可通过调控Nrf2与NF-κB信号通路,增强抗氧化酶活性并下调炎症因子表达,展现出较强的抗炎和抗氧化活性,是功能性食品与医药领域的热点研究对象。

4 LTF在畜禽生产中的应用潜力

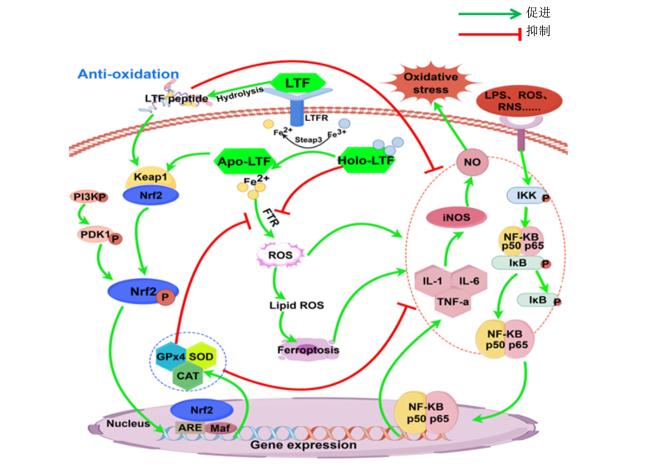
综合上述研究结果,LTF不仅可以通过螯合铁等金属离子抑制铁死亡,LTF及其水解产物还能通过激活Nrf2信号通路及抑制NF-κB信号通路,协同下调炎症因子的表达及提升抗氧化酶的活性,进而有效减缓氧化应激,发挥抗炎作用(作用机制如图1所示)。因此,LTF在畜禽生产中具有较为广泛的应用潜力。在畜禽生产中,受集约化管理和环境因素影响,动物常面临氧化应激问题,然而关于LTF作为抗氧化剂在该领域的研究仍相对有限。本课题组前期研究发现,饲粮中添加黑沙蒿粗多糖或硒均可增强泌乳驴的抗氧化功能和抗炎症反应,其机制与血清和驴乳中LTF的含量升高及驴乳抗氧化活性增强有关[58-59]。在肉仔鸡养殖中,饲粮中添加600 mg/kg LTF可逆转黄曲霉毒素诱导的氧化应激,提升其生长性能,并提高肝脏与肾脏中Nrf2基因的表达及SOD、GPx活性[60]。对泌乳母猪与新生仔猪的研究表明,饲粮中添加200 mg/kg LTF能有效改善其健康状况与抗氧化水平,表现为母猪血清中GPx、SOD活性、T-AOC提高以及新生仔猪肝脏组织中GPx基因表达上调;且添加LTF的抗氧化效果优于血红素等其他铁补剂,这一优势可能与其高效的铁螯合能力有关[61]。此外,仔猪口服LTF水解产物后,可通过上调Nrf2蛋白表达及下调NF-κB蛋白表达,显著降低小肠内炎症因子含量,从而有效预防腹泻发生[55]。高产奶牛常因氧化应激诱发乳腺炎,严重影响其健康与产奶性能。研究表明,在牛乳腺上皮细胞培养体系中添加LTF可显著抑制NF-κB p65磷酸化,下调IL-1βTNF-α等炎症因子表达,这表现出了LTF的抗氧化作用,为预防和治疗奶牛氧化应激导致的乳腺炎,提高奶牛生产性能提供了新方法[54]。在LTF活性肽制备方面,有研究发现,通过控制酶的种类、酶解时间、温度、pH等条件,可定向生成具有特定生物活性的肽段[62]
此外,乳酸菌、芽孢杆菌及部分酵母菌株等微生物可通过发酵产生内源性蛋白酶,进而水解LTF生成小分子活性肽。与酶解法相比,该方法成本较低且产物多样性更高[63]
图1 LTF抗氧化、抗炎及抑制铁死亡的作用机制(Figdraw绘制)

LTF:乳铁蛋白 lactoferrin;LTFR:乳铁蛋白受体 lactoferrin receptor;LTF peptide:乳铁蛋白水解肽;Hydrolysate:水解产物;Apo-LTF:脱铁乳铁蛋白 apolactoferrin;Holo-LTF:铁饱和乳铁蛋白 hololactoferrin;Fe2+:二价铁离子 ferrous ion;Fe3+:三价铁离子 ferric ion;Steap3:前列腺六跨膜上皮抗原3 six-transmembrane epithelial antigen of the prostate 3;FTR:芬顿反应 Fenton reaction;ROS:活性氧 reactive oxygen species;Lipid ROS:脂质活性氧 lipid reactive oxygen species;Ferroptosis:铁死亡;Anti-oxidation:抗氧化;Keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;PI3K:磷脂酰肌醇-3-激酶 phosphatidylinositol-3-kinase;PDK1:3-磷酸肌醇依赖性激酶1 3-phosphoinositide-dependent protein kinase 1;GPx4:谷胱甘肽过氧化物酶 4 glutathione peroxidase 4;SOD:超氧化物歧化酶 superoxide dismutase;CAT:过氧化氢酶 catalase;Nucleus:细胞核;ARE:抗氧化反应元件 antioxidant response element;Gene expression:基因表达;Oxidative stress:氧化应激;LPS:脂多糖 lipopolysaccharide;RNS:活性氮 reactive nitrogen species;NO:一氧化氮 nitric oxide;iNOS:诱导型一氧化氮合酶 inducible nitric oxide synthase;IKK:核因子-κB抑制因子激酶 inhibitor of nuclear factor-κB kinase;IκB:核因子-κB抑制因子 inhibitor of nuclear factor-κB;IL-1:白细胞介素-1 interleukin-1;IL-6:白细胞介素6 interleukin-6;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;NF-κB:核因子-κB nuclear factor-κB。

Fig.1 Mechanisms of LTF in antioxidant, anti-inflammatory and ferroptosis inhibition effects (drawn by Figdraw)

LTF是近年来引起研究者关注的具有应用潜力的营养调控剂,但其在畜禽抗氧化与抗炎症反应中的作用机制、作用途径和方式以及在畜产品中的沉积效果等都缺乏系统且深入的研究。例如,影响LTF铁螯合能力与抗氧化功效的营养及非营养性因素、LTF调控抗氧化与抗炎症反应的核心网络及信号通路关键位点、保障LTF水解产物高生物活性的水解条件筛选及其影响因素、LTF在畜禽体内的代谢规律、适宜应用剂量与应用方式等关键问题,都会对LTF的实际应用效果产生很大的影响。对于这些问题的深入探索,将有助于完善LTF的营养调控理论,为通过营养措施改善畜禽健康、开发富含LTF的功能性产品提供新策略。

5 小结

LTF具有较强的抗氧化与抗炎活性,在畜禽生产中应用前景广阔。LTF的抗氧化与抗炎症反应作用机制主要包括:螯合铁等金属离子从源头抑制ROS生成;通过表面活性基团和糖基化修饰介导抗氧化与抗炎症反应;通过自身及水解产物调节Nrf2、NF-κB等信号通路激活内源性抗氧化防御系统。在现代集约化养殖体系中,畜禽易受多种因素导致的氧化应激影响,进而破坏免疫系统稳态,诱发炎症反应,降低生产性能。今后应进一步研究LTF调控抗氧化与抗炎症反应的代谢路径及其在畜禽生产中的应用效果与方式,从而为通过营养干预改善畜禽健康以及开发新型LTF功能性产品提供新思路。
[1]
SIENES BAILO P, LLORENTE MARTÍN E, CALMARZA P, et al. The role of oxidative stress in neurodegenerative diseases and potential antioxidant therapies[J]. Advances in Laboratory Medicine, 2022, 3(4):342-360.

[2]
WANG H Y, HE S H. Induction of lactoferrin and IL-8 release from human neutrophils by tryptic enzymes via proteinase activated receptor-2[J]. Cell Biology International, 2006, 30(9):688-697.

PMID

[3]
BRUMINI D, CRISCIONE A, BORDONARO S, et al. Whey proteins and their antimicrobial properties in donkey milk:a brief review[J]. Dairy Science & Technology, 2016, 96(1):1-14.

[4]
MARTINI M, SALARI F, LICITRA R, et al. Lysozyme activity in donkey milk[J]. International Dairy Journal, 2019, 96:98-101.

DOI

[5]
BOKKHIM H, BANSAL N, GRØNDAHL L, et al. Physico-chemical properties of different forms of bovine lactoferrin[J]. Food Chemistry, 2013, 141(3):3007-3013.

DOI PMID

[6]
KHAN I T, NADEEM M, IMRAN M, et al. Antioxidant properties of milk and dairy products:a comprehensive review of the current knowledge[J]. Lipids in Health and Disease, 2019, 18(1):41.

DOI

[7]
AISEN P, LEIBMAN A. Lactoferrin and transferrin:a comparative study[J]. Biochimica et Biophysica Acta, 1972, 257(2):314-323.

[8]
CRISAFULLI L, CORRENTI M, GAMMELLA E, et al. Iron trapping in macrophages reshapes the homeostasis of the haematopoietic system[J]. British Journal of Haematology, 2025, 206(5):1485-1496.

DOI

[9]
SHARMA S, SINHA M, KAUSHIK S, et al. C-lobe of lactoferrin:the whole story of the half-molecule[J]. Biochemistry Research International, 2013, 2013:271641.

[10]
ANDERSON B F, BAKER H M, DODSON E J, et al. Structure of human lactoferrin at 3.2-a resolution[J]. Proceedings of the National Academy of Sciences of the United States of America, 1987, 84(7):1769-1773.

PMID

[11]
ZAKHAROVA E T, SOKOLOV A V, PAVLICHENKO N N, et al. Erythropoietin and Nrf2:key factors in the neuroprotection provided by apo-lactoferrin[J]. BioMetals, 2018, 31(3):425-443.

DOI

[12]
WALLY J, BUCHANAN S K. A structural comparison of human serum transferrin and human lactoferrin[J]. BioMetals, 2007, 20(3/4):249-262.

DOI

[13]
SKOOG E C, CASTAGNA V F, OMER S, et al. Structure and function of fermentation-derived bovine lactoferrin produced from Komagataella phaffii[J]. Biochemistry and Cell Biology, 2025, 103:1-17.

[14]
CAVALLO J, RAYNES J, MANDACARU S, et al. Physicochemical and functional comparison of food-grade and precision-fermented bovine lactoferrin[J]. Food Hydrocolloids, 2025, 166:111380.

[15]
SAITO H, MIYAKAWA H, TAMURA Y, et al. Potent bactericidal activity of bovine lactoferrin hydrolysate produced by heat treatment at acidic pH[J]. Journal of Dairy Science, 1991, 74(11):3724-3730.

PMID

[16]
NOHL H, GILLE L, STANIEK K. Intracellular generation of reactive oxygen species by mitochondria[J]. Biochemical Pharmacology, 2005, 69(5):719-723.

PMID

[17]
FERRER-SUETA G, CAMPOLO N, TRUJILLO M, et al. Biochemistry of peroxynitrite and protein tyrosine nitration[J]. Chemical Reviews, 2018, 118(3):1338-1408.

DOI

[18]
GENTILE F, ARCARO A, PIZZIMENTI S, et al. DNA damage by lipid peroxidation products:implications in cancer,inflammation and autoimmunity[J]. AIMS Genetics, 2017, 4(2):103-137.

DOI

[19]
LI Z L, XIONG Q, LI Q, et al. Parthenolide ameliorates diabetic retinopathy by suppressing microglia-induced Müller cell gliosis and inflammation via the NF-κB signalling[J]. International Immunopharmacology, 2025, 151:114219.

[20]
QIAO C M, TAN L L, MA X Y, et al. Mechanism of S100A9-mediated astrocyte activation via TLR4/NF-κB in Parkinson’s disease[J]. International Immunopharmacology, 2025, 146:113938.

[21]
JIN K P, LIU Y, SHI Y Z, et al. Erratum:PTPROt aggravates inflammation by enhancing NF-κB activation in liver macrophages during nonalcoholic steatohepatitis:erratum[J]. Theranostics, 2022, 12(8):3604-3606.

DOI

[22]
FARID A S, EL SHEMY M A, NAFIE E, et al. Anti-inflammatory,anti-oxidant and hepatoprotective effects of lactoferrin in rats[J]. Drug and Chemical Toxicology, 2021, 44(3):286-293.

DOI

[23]
HAN N N, LI H J, LI G, et al. Effect of bovine lactoferrin as a novel therapeutic agent in a rat model of sepsis-induced acute lung injury[J]. AMB Express, 2019, 9(1):177.

DOI PMID

[24]
KUBO S, MIYAKAWA M, TADA A, et al. Lactoferrin and its digestive peptides induce interferon-α production and activate plasmacytoid dendritic cells ex vivo[J]. BioMetals, 2023, 36(3):563-573.

DOI

[25]
NEMATI M, AKSEH S, AMIRI M, et al. Lactoferrin suppresses LPS-induced expression of HMGB1,microRNA 155,146,and TLR4/MyD88/NF-κB pathway in RAW264.7 cells[J]. Immunopharmacology and Immunotoxicology, 2021, 43(2):153-159.

DOI

[26]
HU P, ZHAO F Z, WANG J, et al. Lactoferrin attenuates lipopolysaccharide-stimulated inflammatory responses and barrier impairment through the modulation of NF-κB/MAPK/Nrf2 pathways in IPEC-J2 cells[J]. Food & Function, 2020, 11(10):8516-8526.

[27]
ABDELMONEEM M A, ABD ELWAKIL M M, KHATTAB S N, et al. Lactoferrin-dual drug nanoconjugate:synergistic anti-tumor efficacy of docetaxel and the NF-κB inhibitor celastrol[J]. Materials Science and Engineering:C, 2021, 118:111422.

[28]
GUTTERIDGE J M, PATERSON S K, SEGAL A W, et al. Inhibition of lipid peroxidation by the iron-binding protein lactoferrin[J]. Biochemical Journal, 1981, 199(1):259-261.

PMID

[29]
HABIB H M, IBRAHIM W H, SCHNEIDER-STOCK R, et al. Camel milk lactoferrin reduces the proliferation of colorectal cancer cells and exerts antioxidant and DNA damage inhibitory activities[J]. Food Chemistry, 2013, 141(1):148-152.

DOI PMID

[30]
OBAYASHI M, KIMURA M, HARAGUCHI A, et al. Bovine lactoferrin inhibits Plasmodium berghei growth by binding to heme[J]. Scientific Reports, 2024, 14(1):20344.

DOI

[31]
MOROVATI S, BAGHKHEIRATI A A, SEKHAVATI M H, et al. A review on cLF36,a novel recombinant antimicrobial peptide-derived camel lactoferrin[J]. Probiotics and Antimicrobial Proteins, 2024, 16(5):1886-1905.

DOI

[32]
EKER F, BOLAT E, PEKDEMIR B, et al. Lactoferrin:neuroprotection against Parkinson’s disease and secondary molecule for potential treatment[J]. Frontiers in Aging Neuroscience, 2023, 15:1204149.

[33]
RAGHUVEER T S, MCGUIRE E M, MARTIN S M, et al. Lactoferrin in the preterm infants’ diet attenuates iron-induced oxidation products[J]. Pediatric Research, 2002, 52(6):964-972.

DOI

[34]
ANGHEL L, RADULESCU A, ERHAN R V. Structural aspects of human lactoferrin in the iron-binding process studied by molecular dynamics and small-angle neutron scattering[J]. The European Physical Journal E, 2018, 41(9):109.

DOI

[35]
KONG Y Y, LI J, LIN R F, et al. Understanding the unique mechanism of ferroptosis:a promising therapeutic target[J]. Frontiers in Cell and Developmental Biology, 2024, 11:1329147.

[36]
CILLEROS-HOLGADO P, GÓMEZ-FERNÁNDEZ D, PIÑERO-PÉREZ R, et al. Polydatin and nicotinamide prevent iron accumulation and lipid peroxidation in cellular models of mitochondrial diseases[J]. Antioxidants, 2025, 14(2):215.

DOI

[37]
XIAO Z N, SHEN D M, LAN T, et al. Reduction of lactoferrin aggravates neuronal ferroptosis after intracerebral hemorrhagic stroke in hyperglycemic mice[J]. Redox Biology, 2022, 50:102256.

[38]
CHEN Y, YI X, HUO B, et al. BRD4770 functions as a novel ferroptosis inhibitor to protect against aortic dissection[J]. Pharmacological Research, 2022, 177:106122.

[39]
ZHANG Z, LU M L, CHEN C L, et al. Holo-lactoferrin:the link between ferroptosis and radiotherapy in triple-negative breast cancer[J]. Theranostics, 2021, 11(7):3167-3182.

DOI

[40]
YAGO T, TADA A, KUBO S, et al. Bovine lactoferrin enhances toll-like receptor 7 response in plasmacytoid dendritic cells and modulates cellular immunity[J]. International Journal of Molecular Sciences, 2024, 25(24):13369.

DOI

[41]
LI C A, LU Y, WANG J, et al. Immunoregulation of bovine lactoferrin together with osteopontin promotes immune system development and maturation[J]. Food & Function, 2024, 15(2):866-880.

[42]
KARAV S, GERMAN J B, ROUQUIÉ C, et al. Studying lactoferrin N-glycosylation[J]. International Journal of Molecular Sciences, 2017, 18(4):870.

DOI

[43]
LÖNNERDAL B, JIANG R L, DU X O. Bovine lactoferrin can be taken up by the human intestinal lactoferrin receptor and exert bioactivities[J]. Journal of Pediatric Gastroenterology and Nutrition, 2011, 53(6):606-614.

DOI PMID

[44]
OGASAWARA Y, IMASE M, ODA H, et al. Lactoferrin directly scavenges hydroxyl radicals and undergoes oxidative self-degradation:a possible role in protection against oxidative DNA damage[J]. International Journal of Molecular Sciences, 2014, 15(1):1003-1013.

DOI

[45]
BO L Y, PAN Z Q, ZHANG Q, et al. Activity changes of the peptic lactoferrin hydrolysate in human gastric cancer AGS cells in response to Cu(Ⅱ) or Mn(Ⅱ) addition[J]. Foods, 2023, 12(14):2662.

DOI

[46]
GRZESZCZAK K, ŁANOCHA-ARENDARCZYK N, MALINOWSKI W, et al. Oxidative stress in pregnancy[J]. Biomolecules, 2023, 13(12):1768.

DOI

[47]
AL ZHARANI M M, ALMUQRI E A, AHMED M M, et al. Use of lactoferrin supplement as an efficient antioxidant to ameliorate the effects of mercury-induced oxidative stress in male Wistar rats[J]. Biomedical and Biotechnology Research Journal, 2024, 8(1):45-52.

DOI

[48]
赵慧娟. 牛乳铁蛋白的铜锌增补对其免疫及抗炎活性影响作用研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2019:27-28.

ZHAO H J. Effects of the supplemented copper/zinc ions on immuno-modulatory and anti-inflammatory activities of bovine lactoferrin[D]. Master’s Thesis.Harbin: Northeast Agricultural University, 2019:27-28. (in Chinese)

[49]
LI D M, DING L, YAN Y L, et al. Lactoferrin alleviates ethanol-induced injury via promoting Nrf2 nuclear translocation in BRL-3A rat liver cells[J]. International Journal of Molecular Sciences, 2023, 24(23):16848.

DOI

[50]
DA F F, MENG Y T, CHEN Y F, et al. Tetracera asiatica flavonoids attenuate alcohol-induced liver injury by suppressing oxidative stress and inflammation mediated by the Keap-1/Nrf2/HO-1,NF-κB/MAPK and PERK/Nrf2 signaling pathways in alcoholic liver injury rats[J]. Tissue & Cell, 2025, 96:102913.

[51]
YAMI H A, TAHMOORESPUR M, JAVADMANESH A, et al. The immunomodulatory effects of lactoferrin and its derived peptides on NF-κB signaling pathway:a systematic review and Meta-analysis[J]. Immunology and Inflammation Diseases, 2023, 11(8):e972.

[52]
李愿, 郝颖, 赵艳丽, 等. 维生素A缓解H2O2诱导损伤的奶牛乳腺上皮细胞内乳蛋白合成下降的研究[J]. 饲料研究, 2023, 46(7):63-67.

LI Y, HAO Y, ZHAO Y L, et al. Vitamin A alleviates decrease in milk protein synthesis in bovine mammary epithelial cells injured by H2O2[J]. Feed Research, 2023, 46(7):63-67. (in Chinese)

[53]
HABIB C N, ALI A E, ANBER N H, et al. Lactoferrin ameliorates carfilzomib-induced renal and pulmonary deficits:insights to the inflammasome NLRP3/NF-κB and PI3K/Akt/GSK-3β/MAPK axes[J]. Life Sciences, 2023, 335:122245.

[54]
ZHANG K, ZHANG R Z, ZHANG Y Y, et al. Regulation of LPS-induced inflammatory responses in bovine mammary epithelial cells via TLR4-mediated NF-κB and MAPK signaling pathways by lactoferrin[J]. Life, 2025, 15(1):69.

DOI

[55]
XIE W C, SONG L Y, WANG X Y, et al. A bovine lactoferricin-lactoferrampin-encoding Lactobacillus reuteri CO21 regulates the intestinal mucosal immunity and enhances the protection of piglets against enterotoxigenic Escherichia coli K88 challenge[J]. Gut Microbes, 2021, 13(1):1956281.

DOI

[56]
BORGES T, COELHO P, PRUDÊNCIO C, et al. Bioactive peptides from milk proteins with antioxidant,anti-inflammatory,and antihypertensive activities[J]. Foods, 2025, 14(3):535.

DOI

[57]
PAN Y, JIANG Y T, CUI Y L, et al. Truncated lactoferricin peptide controls cervical cancer cell proliferation via lncRNA-NKILA/NF-κB feedback loop[J]. Protein and Peptide Letters, 2022, 29(3):268-280.

DOI

[58]
LI S Y, TONG M M, LI L, et al. Rectal microbiomes and serum metabolomics reveal the improved effect of Artemisia ordosica crude polysaccharides on the lactation performance,antioxidant status,and immune responses of lactating donkeys[J]. Journal of Dairy Science, 2024, 107(9):6696-6716.

DOI

[59]
TONG M M, LI S Y, HUI F, et al. Effects of dietary selenium yeast supplementation on lactation performance,antioxidant status,and immune responses in lactating donkeys[J]. Antioxidants, 2024, 13(3):275.

DOI

[60]
CHEN H, BUZDAR J A, RIAZ R, et al. Bovine lactoferrin alleviates aflatoxin B1 induced hepatic and renal injury in broilers by mediating Nrf2 signaling pathway[J]. Poultry Science, 2024, 103(12):104316.

DOI

[61]
XING X K, ZHANG C Y, JI P, et al. Effects of different iron supplements on reproductive performance and antioxidant capacity of pregnant sows as well as iron content and antioxidant gene expression in newborn piglets[J]. Animals, 2023, 13(3):517.

DOI

[62]
BIELECKA M, CICHOSZ G, CZECZOT H. Antioxidant,antimicrobial and anticarcinogenic activities of bovine milk proteins and their hydrolysates—a review[J]. International Dairy Journal, 2022, 127:105208.

[63]
ZANUTTO-ELGUI M R, VIEIRA J C S, PRADO D Z D, et al. Production of milk peptides with antimicrobial and antioxidant properties through fungal proteases[J]. Food Chemistry, 2019, 278:823-831.

DOI

Outlines

/