RESEARCH PAPER

Effects of Pyrroloquinoline Quinone on Growth Performance, Antioxidant Function and Intestinal Microbiota of Weaned Piglets

  • XU Haocheng ,
  • YAO Xianci ,
  • ZHENG Kaitian ,
  • ZHONG Yifan ,
  • YANG Caimei , *
Expand
  • College of Animal Science and Technology, College of Veterinary Medicine, Zhejiang A&F University, Hangzhou 311300, China
* professor, E-mail:

Received date: 2025-07-08

  Online published: 2026-01-13

Abstract

This experiment aimed to investigate the effects of pyrroloquinoline quinone (PQQ) on growth performance, antioxidant function and intestinal microbiota of weaned piglets. A total of 108 healthy “Duroc×Yorkshire×Landrace” weaned piglets aged (22±1) days with similar body weights, half male and half female, were randomly divided into 3 groups with 6 replicates per group and 6 piglets per replicate. Piglets in the control group were fed a basal diet, while those in the experimental groups were fed the basal diets supplemented with 4 and 8 mg/kg PQQ, respectively. The experimental period lasted for 28 days. The results showed that compared with the control group: 1) dietary supplementation with 4 and 8 mg/kg PQQ significantly increased the average daily gain during days 15 to 28 and days 1 to 28 (P<0.05), and significantly decreased the feed-to-gain ratio (P<0.05). 2) Dietary supplementation with 4 and 8 mg/kg PQQ significantly decreased the contents of pro-inflammatory cytokines interleukin-1β (IL-1β) and interleukin-6 (IL-6) in serum and liver (P<0.05); regarding oxidative damage indices, supplementation with 4 and 8 mg/kg PQQ significantly decreased the contents of reactive oxygen species (ROS) in serum, as well as malondialdehyde (MDA) and ROS in liver (P<0.05); for antioxidant indicators, supplementation with 4 and 8 mg/kg PQQ significantly increased the activities of catalase (CAT), glutathione peroxidase (GSH-Px), superoxide dismutase (SOD), glutathione S-transferase (GST) and γ-glutamylcysteine ligase (γ-GCL), the content of reduced glutathione (GSH), and total antioxidant capacity (T-AOC) in serum, as well as the activities of SOD and GST in liver (P<0.05). 3) Dietary supplementation with 8 mg/kg PQQ significantly increased the villus height to crypt depth ratio (V/C) in the duodenum and ileum (P<0.05), while supplementation with 4 mg/kg PQQ significantly increased the V/C in jejunum (P<0.05). 4) Dietary supplementation with 4 and 8 mg/kg PQQ significantly increased the contents of acetic acid, propionic acid, isobutyric acid, butyric acid and isovaleric acid in cecal contents (P<0.05). 5) Dietary supplementation with 4 and 8 mg/kg PQQ significantly decreased the relative abundances of Clostridium, Terrisporobacter and Blautia in cecum (P<0.05), and significantly increased the relative abundances of Prevotellaceae_NK3B31_group, norank_f_Prevotellaceae, UCG-002, Rikenellaceae_RC9_gut_group and NK4A214_group in cecum (P<0.05). In conclusion, PQQ can alleviate weaning stress in piglets by enhancing antioxidant capacity, improving intestinal morphology, promoting short-chain fatty acid production and optimizing intestinal microbiota structure. Based on the results of this study, it is recommended that the dietary supplementation level of PQQ for weaned piglets be 4 mg/kg.

Cite this article

XU Haocheng , YAO Xianci , ZHENG Kaitian , ZHONG Yifan , YANG Caimei . Effects of Pyrroloquinoline Quinone on Growth Performance, Antioxidant Function and Intestinal Microbiota of Weaned Piglets[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 201 -218 . DOI: 10.12418/CJAN2026.017

在仔猪断奶期间,受环境改变、饲粮变化以及与母畜分离等多重应激因素影响[1],其免疫功能与肠道屏障功能易受损,进而导致生长迟缓、腹泻高发甚至死亡[2]。断奶应激已成为制约我国生猪产业发展的关键因素。因此,有效缓解断奶应激对于提升仔猪生长性能及保障养殖经济效益具有重要意义。
吡咯喹啉醌(PQQ)是一种新型含醌结构的非共价结合氧化还原辅酶因子,最早于细菌中被发现,可参加氧化还原反应,并在电子传递链中作为电子供体或受体发挥作用[3]。在生物体内,PQQ根据结合电子状态可分为醌型(氧化型)、半醌型和氢醌型(还原型),这些形式之间能够通过获得电子和质子的情况相互转化,因此其在反应中具有可逆性[4]。基于这一特性,PQQ在动物机体内具有多种生理功能,且较高的氧化还原电势使其表现出优异的抗氧化作用。研究表明,PQQ能够清除猪小肠上皮细胞产生的活性氧(ROS)[5],这是由于PQQ可以与氧化还原酶结合并改变其构象,从而增强酶活性以清除ROS[6]。此外,PQQ可显著降低血清肌酸激酶和乳酸脱氢酶活性,提高抗氧化酶活性,从而抑制ROS和丙二醛(MDA)的生成[7]。另有研究证实,在肥胖诱导的妊娠及哺乳期小鼠中补充PQQ可增强其后代的线粒体功能及脂质氧化代谢能力,从而预防后代脂肪肝的发生[8]。PQQ还被发现具有促进幼龄动物生长的作用,例如在饲粮中添加PQQ可提高肉鸡的生长性能和胴体产量[9]
已有研究表明,饲粮中添加PQQ可通过改善断奶仔猪的肠道形态、增强肠道紧密连接功能及提升机体抗氧化能力,有效改善其生长性能并降低腹泻率[10];同时,PQQ还可通过抑制核因子-κB(NF-κB)通路及调节大肠杆菌K88攻毒仔猪的结肠菌群失衡,有效减轻仔猪空肠黏膜的炎症损伤[5]。尽管PQQ在断奶仔猪中的作用效果已有相关报道,但其对断奶仔猪抗氧化功能及肠道健康方面的作用机制仍需深入探讨。因此,本试验旨在探究PQQ对断奶仔猪生长性能、抗氧化功能和肠道菌群的影响,以期为PQQ在断奶仔猪生产中的应用提供理论依据和实践参考。

1 材料与方法

1.1 伦理声明

动物试验方案经浙江农林大学动物伦理与福利委员会审查批准(批准号:ZAFUAC2023062),所有操作程序均遵循动物保护、福利及相关伦理原则,符合国家关于动物福利与伦理的相关规定。

1.2 试验设计与饲粮

采用单因素随机试验设计,选取108头体重接近、健康状况良好的(22±1)日龄“杜大长”断奶仔猪,公母各占1/2,随机分为3组,每组6个重复,每个重复6头猪。对照组饲喂基础饲粮,试验组分别在基础饲粮中添加4和8 mg/kg PQQ(纯度≥98.0%,以干基计)。试验期28 d。基础饲粮参照NRC(2012)猪营养需要标准配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 67.20
膨化大豆Extruded soybean 7.00
膨化豆粕
Extruded soybean meal (CP 43%)
13.60
发酵豆粕Fermented soybean meal 5.40
乳清粉Dried whey 0.80
进口鱼粉Imported fish meal (CP 65%) 1.20
稻壳粉Rice husk powder 0.25
二水合磷酸氢钙CaHPO4·2H2O 1.12
石粉Limestone 0.96
食盐NaCl 0.34
氯化胆碱Choline chloride 0.10
L-赖氨酸盐酸盐
L-Lys·HCl (78%)
0.56
DL-蛋氨酸DL-Met (98%) 0.20
L-苏氨酸L-Thr (98%) 0.20
L-色氨酸L-Trp (98%) 0.07
微量元素预混料Trace mineral premix1) 0.50
维生素预混料Vitamin premix2) 0.50
合计Total 100.00
营养水平Nutrient levels3)
粗蛋白质CP 19.27
消化能DE/(MJ/kg) 14.10
赖氨酸Lys 1.30
蛋氨酸+半胱氨酸Met+Cys 0.78
苏氨酸Thr 0.86
色氨酸Trp 0.30
标准回肠可消化赖氨酸SID Lys 0.97
标准回肠可消化蛋氨酸+标准回肠
可消化半胱氨酸
SID Met+SID Cys
0.61
标准回肠可消化苏氨酸SID Thr 0.64
标准回肠可消化色氨酸SID Trp 0.18
标准全肠道可消化磷STTD P 0.37
钙Ca 0.78
总磷TP 0.61

1)微量元素预混料为每千克饲粮提供 Trace mineral premix provided the following per kg of the diet:Zn (as zinc sulfate) 70 mg,Cu (as copper sulfate) 25 mg,Mn (as manganese sulfate) 20 mg,I (as potassium iodide) 0.4 mg,Se (as sodium selenite) 0.4 mg。

3)粗蛋白质、钙和总磷为实测值,其余为计算值。CP, Ca and TP were measured values, while the others were calculated values.

2)维生素预混料为每千克饲粮提供 Vitamin premix provided the following per kg of the diet:VA 7 500 IU,VD3 750 IU,VE 25 IU,VK3 2.5 mg,VB1 2.0 mg,VB2 4.0 mg,VB6 10.0 mg,VB12 0.025 mg,烟酸 nicotinic acid 40 mg,D-泛酸 D-pantothenic acid 16.0 mg,叶酸 folic acid 2.0 mg,生物素 biotin 0.18 mg,植酸酶 phytase(5 000 U/g) 100 mg。

1.3 饲养管理

试验开始前,对所有试验猪打耳号及称重。试验期间保持各组管理与环境条件一致,猪只自由采食和饮水,按常规程序进行驱虫及免疫接种。每天详细记录采食量、死亡率及发病率。

1.4 样品采集与指标测定

1.4.1 饲粮营养成分

饲粮粗蛋白质含量参照GB/T 6432—2018的方法测定,钙含量参照GB/T 6436—2018的方法测定,总磷含量参照GB/T 6437—2018的方法测定,标准回肠可消化氨基酸含量参照荷兰CVB基准数据库(2023年)计算,标准全肠道可消化磷含量参照NRC(2012)计算,消化能参照NY/T 65—2004计算。

1.4.2 生长性能

在试验第1、14和28天,对空腹12 h的仔猪进行称重。试验期间,每天准确记录各重复的采食量,计算平均日增重、平均日采食量和料重比。

1.4.3 血清炎症、氧化损伤和抗氧化指标

在试验第1天和第28天,对仔猪进行前腔静脉采血,分离血清后于-20 ℃保存。血清相关指标均采用南京奥青生物技术有限公司生产的试剂盒进行测定,包括炎症指标[白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)和肿瘤坏死因子-α(TNF-α)含量]、氧化损伤指标[8-羟基脱氧鸟苷(8-OHDG)、MDA和ROS含量]和抗氧化指标[还原型谷胱甘肽(GSH)含量、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)、超氧化物歧化酶(SOD)、谷胱甘肽硫转移酶(GST)、γ-谷氨酰半胱氨酸连接酶(γ-GCL)活性及总抗氧化能力(T-AOC)]。其中IL-1β、IL-6、IL-10、TNF-α、8-OHDG、MDA含量和SOD活性采用酶联免疫吸附试验(ELISA)法测定;GSH含量、CAT、GSH-Px、GST、γ-GCL活性和T-AOC采用可见分光光度法测定;ROS含量采用荧光法测定,检测结果以荧光响应值表示。

1.4.4 组织器官病理评分及肠道形态结构

饲养试验结束后,每组随机选取6只仔猪进行屠宰并解剖,采集心脏、肝脏、脾脏、肺脏、肾脏、胰腺、淋巴结、胃、骨髓、胸腺及十二指肠、空肠、回肠、结肠等组织器官样品。所采集样品用10%多聚甲醛固定12 h,经脱水、透明、浸蜡、包埋、切片处理后,将石蜡切片脱蜡至水,使用苏木精-伊红(HE)进行染色,再经脱水、封片,制备成HE染色切片。
组织器官病理评分:对各组HE染色切片进行系统性组织病理学检查,并依据下列组织病变的严重程度进行病理评分,按无、轻、中、重分别计0、1、2、3分。具体评分标准如下:心脏依据心肌细胞变性及肌纤维间隙增大程度;肝脏依据肝血窦充血、肝细胞变性、点状坏死和汇管区炎症细胞浸润程度;肺脏依据肺泡隔增厚、炎症细胞浸润、肺泡腔变小,以及细支气管和小动脉管壁的慢性炎症细胞渗出、浸润与重构情况;肾脏依据肾小管空泡变性及肾小球细胞增多程度;胰腺依据外分泌腺变性、炎症细胞浸润及胰岛内分泌细胞增生情况;胃、十二指肠、空肠、回肠和结肠依据黏膜层免疫细胞数量和/或炎症细胞浸润程度;脾脏、淋巴结、骨髓及胸腺分别依据脾小体、淋巴滤泡、造血细胞及皮质淋巴细胞的增生程度。
肠道形态结构:观察十二指肠、空肠和回肠的形态结构并测定绒毛高度与隐窝深度,计算绒毛高度/隐窝深度(绒隐比)。

1.4.5 肝脏炎症、氧化损伤和抗氧化指标

取1.4.4中采集的肝脏样品,对炎症、氧化损伤和抗氧化指标进行检测,检测指标及所用方法同1.4.3。

1.4.6 盲肠内容物短链脂肪酸(SCFAs)含量

仔猪屠宰后,采集盲肠内容物样品,样品液氮速冻后置于-80 ℃保存。将0.5 g盲肠内容物样品以1∶3(质量体积比)的比例溶于双蒸水中,15 907×g离心10 min以去除杂质,再按5∶1(体积比)的比例加入25%偏磷酸,相同条件下再次离心以进一步纯化。使用1 mL注射器将上清液通过无机相滤头过滤,并转移至气相色谱进样瓶(GC7890,安捷伦公司,美国)中。采用配备HP-FFAP色谱柱(北京普蒙科技有限公司)的气相色谱仪进行SCFAs含量分析。经标准曲线校准后,可直接从仪器读取样品SCFAs含量。

1.4.7 盲肠菌群

Illumina测序及微生物组学分析由上海美吉生物医药科技有限公司协助完成。采用十二烷基硫酸钠(SDS)法从盲肠内容物中提取基因组DNA;通过3步PCR对16S rRNA基因的V3~V4区域进行扩增,所用引物为341F(5'-CCTACGGGRSGCAGCAG-3')和806R(5'-GGACTACVVGGGTATCTAATC-3');扩增产物经琼脂糖凝胶电泳质检后,进行等摩尔混合与重新定量,再使用E.Z.N.A.®Stool DNA Kit试剂盒(Omega Bio-Tek公司,美国)纯化扩增子,通过MiSeq平台对纯化产物进行测序。采用QIIME2软件(2020.8版本; https://qiime2.org)处理原始测序数据,处理步骤包括解复用、质量过滤、去重复、嵌合体检测及双端reads合并;使用R语言软件(3.3.1版本)开展微生物数据的下游分析与可视化,包括α多样性和β多样性分析等。

1.5 数据统计与分析

采用SPSS 16.0软件中的GLM过程进行方差分析,对原始数据中个体偏离平均值±2倍标准差的数据进行剔除,采用单因素方差分析(one-way ANOVA)统计各组间的差异显著性,并用LSD法进行多重比较,结果以平均值和均值标准误(SEM)表示,P<0.05表示差异显著。采用GraphPad Prism 8.0软件绘图。

2 结果与分析

2.1 PQQ对断奶仔猪生长性能的影响

表2可知,各组断奶仔猪第1天和第14天的体重均无显著差异(P>0.05),4和8 mg/kg PQQ组第28天体重显著高于对照组(P<0.05)。与对照组相比,第1~14天,4和8 mg/kg PQQ组平均日增重、平均日采食量和料重比均无显著变化(P>0.05);第15~28天及第1~28天,4和8 mg/kg PQQ组平均日增重显著提高(P<0.05),平均日采食量无显著变化(P>0.05),料重比显著降低(P<0.05)。
表2 PQQ对断奶仔猪生长性能的影响

Table 2 Effects of PQQ on growth performance of weaned piglets

项目
Items
吡咯喹啉醌添加水平
PQQ supplemental levels/(mg/kg)
SEM P
P-value
0(对照组
Control group)
4 8
体重BW/kg
第1天Day 1 8.03 7.99 8.01 0.031 0.972
第14天Day 14 11.05 11.43 11.35 0.044 0.201
第28天Day 28 15.83b 17.25a 17.36a 0.191 0.001
平均日增重ADG/(g/d)
第1~14天Days 1 to 14 215.71 245.71 238.57 3.032 0.191
第15~28天Days 15 to 28 341.43b 415.71a 429.29a 8.047 0.002
第1~28天Days 1 to 28 278.57b 330.71a 333.93a 5.417 0.001
平均日采食量ADFI/(g/d)
第1~14天Days 1 to 14 451.03 452.37 448.25 4.317 0.844
第15~28天Days 15 to 28 755.42 781.77 799.21 12.036 0.541
第1~28天Days 1 to 28 604.41 612.37 620.53 6.026 0.593
料重比F/G
第1~14天Days 1 to 14 2.09 1.84 1.87 0.034 0.051
第15~28天Days 15 to 28 2.21a 1.88b 1.86b 0.051 0.020
第1~28天Days 1 to 28 2.16a 1.85b 1.86b 0.032 0.005

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 PQQ对断奶仔猪血清炎症、氧化损伤和抗氧化指标的影响

表3可知,与对照组相比,4和8 mg/kg PQQ组血清促炎因子IL-1β和IL-6含量显著降低(P<0.05),8 mg/kg PQQ组血清促炎因子TNF-α含量显著降低(P<0.05)。8 mg/kg PQQ组血清抑炎因子IL-10含量较4 mg/kg PQQ组和对照组显著提高(P<0.05)。在氧化损伤指标中,与对照组相比,4 mg/kg PQQ组血清8-OHDG含量显著降低(P<0.05),8 mg/kg PQQ组血清8-OHDG含量有所降低,但差异不显著(P>0.05);4和8 mg/kg PQQ组血清ROS含量显著降低(P<0.05),血清MDA含量有所降低,但差异不显著(P>0.05)。在抗氧化指标中,与对照组相比,4和8 mg/kg PQQ组血清CAT、GSH-Px、SOD、GST、γ-GCL活性、T-AOC及GSH含量均显著提高(P<0.05)。
表3 PQQ对断奶仔猪血清炎症、氧化损伤和抗氧化指标的影响

Table 3 Effects of PQQ on serum inflammation, oxidative damage and antioxidant indices of weaned piglets

项目
Items
吡咯喹啉醌添加水平
PQQ supplemental levels/(mg/kg)
SEM P
P-value
0(对照组
Control group)
4 8
白细胞介素-1β IL-1β/(pg/mL) 143.95a 95.74b 95.38b 3.278 <0.001
白细胞介素-6 IL-6/(ng/mL) 0.47a 0.30b 0.28b 0.009 <0.001
白细胞介素-10 IL-10/(pg/mL) 191.86b 183.78b 281.52a 4.289 <0.001
肿瘤坏死因子-α TNF-α/(ng/mL) 2.19a 2.02ab 1.81b 0.093 0.021
8-羟基脱氧鸟苷8-OHDG/(ng/mL) 84.51a 67.00b 77.97ab 2.542 0.002
丙二醛MDA/(nmol/mL) 11.93 9.46 8.86 1.620 0.215
活性氧ROS 1 271.33a 792.17b 811.67b 14.165 <0.001
过氧化氢酶CAT/(U/mL) 50.89b 92.65a 124.30a 10.307 <0.001
还原型谷胱甘肽GSH/(μmol/mL) 1.33c 1.72a 1.56b 0.032 0.004
总抗氧化能力T-AOC/(U/mL) 6.91c 10.99b 22.07a 0.473 <0.001
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 187.60c 272.11b 343.76a 17.030 <0.001
超氧化物歧化酶SOD/(U/mL) 84.32b 140.61a 153.07a 4.699 <0.001
谷胱甘肽硫转移酶GST/(U/L) 92.68b 154.58a 166.83a 9.990 <0.001
γ-谷氨酰半胱氨酸连接酶γ-GCL/(U/L) 1.80b 3.88a 4.74a 0.467 <0.001

ROS含量以荧光响应值表示。表5同。

ROS content was expressed as the fluorescence response value. The same as Table 5.

2.3 PQQ对断奶仔猪组织器官病理评分的影响

各组断奶仔猪组织器官HE染色切片的病理评分结果如表4所示。与对照组相比,4和8 mg/kg PQQ组各组织器官均无显著性病理变化(P>0.05)。
表4 PQQ对断奶仔猪组织器官病理评分的影响

Table 4 Effects of PQQ on tissue and organ pathology scores of weaned piglets

项目
Items
吡咯喹啉醌添加水平
PQQ supplemental levels/(mg/kg)
SEM P
P-value
0(对照组
Control group)
4 8
心脏Heart 0.17 0.00 0.08 0.048 0.562
肝脏Liver 0.17 0.42 0.50 0.100 0.704
脾脏Spleen 0.00 0.00 0.00
肺脏Lung 0.58 0.92 0.75 0.096 0.698
肾脏Kidney 0.00 0.58 0.50 0.182 0.293
淋巴结Lymph node 0.00 0.00 0.00
胃Stomach 0.25 0.50 0.50 0.083 0.626
胸腺Thymus 0.00 0.00 0.00
胰腺Pancreas 0.00 0.00 0.00
骨髓Bone marrow 0.00 0.00 0.00
十二指肠Duodenum 1.83 1.75 1.75 0.028 0.935
空肠Jejunum 1.25 1.08 1.00 0.073 0.512
回肠Ileum 1.50 1.25 1.58 0.100 0.302
结肠Colon 1.33 1.42 1.08 0.100 0.607

2.4 PQQ对断奶仔猪肝脏炎症、氧化损伤及抗氧化指标的影响

表5可知,与对照组相比,4和8 mg/kg PQQ组肝脏促炎因子IL-1β和IL-6含量显著降低(P<0.05),8 mg/kg PQQ组肝脏促炎因子TNF-α含量显著降低(P<0.05)。4 mg/kg组肝脏抑炎因子IL-10含量较8 mg/kg PQQ组和对照组显著提高(P<0.05)。在氧化损伤指标中,与对照组相比,8 mg/kg PQQ组肝脏8-OHDG含量显著降低(P<0.05),4 mg/kg PQQ组肝脏8-OHDG含量有所降低,但差异不显著(P>0.05);4和8 mg/kg PQQ组肝脏MDA和ROS含量显著降低(P<0.05)。在抗氧化指标中,与对照组相比,4和8 mg/kg PQQ组肝脏SOD和GST活性显著提高(P<0.05),肝脏CAT活性有所提高,但差异不显著(P>0.05);4 mg/kg PQQ组肝脏T-AOC显著提高(P<0.05);8 mg/kg PQQ组肝脏GSH-Px和γ-GCL活性显著提高(P<0.05),肝脏GSH含量显著降低(P<0.05)。
表5 PQQ对断奶仔猪肝脏炎症、氧化损伤和抗氧化指标的影响

Table 5 Effects of PQQ on liver inflammation, oxidative damage and antioxidant indices of weaned piglets

项目
Items
吡咯喹啉醌添加水平
PQQ supplemental levels/(mg/kg)
SEM P
P-value
0(对照组
Control group)
4 8
白细胞介素-1β IL-1β/(pg/mg prot) 20.33a 14.55b 11.88c 0.765 <0.001
白细胞介素-6 IL-6/(ng/mg prot) 6.25a 3.34b 1.90c 0.642 <0.001
白细胞介素-10 IL-10/(pg/mg prot) 40.15b 50.87a 35.30b 1.103 0.004
肿瘤坏死因子-α TNF-α/(ng/mg prot) 0.71a 0.72a 0.38b 0.035 <0.001
8-羟基脱氧鸟苷8-OHDG/(ng/mg prot) 15.08a 13.19a 9.82b 0.825 <0.001
丙二醛MDA/(nmol/mg prot) 4.02a 2.77b 1.97b 0.341 <0.001
活性氧ROS 2 107.68a 1 840.83b 1 267.17c 30.671 <0.001
过氧化氢酶CAT/(U/mg prot) 29.38 37.46 44.83 1.765 0.068
还原型谷胱甘肽GSH/(μmol/mg prot) 0.26a 0.29a 0.20b 0.023 0.002
总抗氧化能力T-AOC/(U/mg prot) 11.11b 12.40a 11.98b 0.418 0.042
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 68.31b 71.51b 95.99a 3.544 <0.001
超氧化物歧化酶SOD/(U/mg prot) 9.73c 16.71b 21.01a 0.810 <0.001
谷胱甘肽硫转移酶GST/(U/mg prot) 19.55c 31.94b 39.10a 1.226 <0.001
γ-谷氨酰半胱氨酸连接酶γ-GCL/(U/g prot) 0.83b 0.91b 1.13a 0.077 0.005

2.5 PQQ对断奶仔猪肠道形态结构的影响

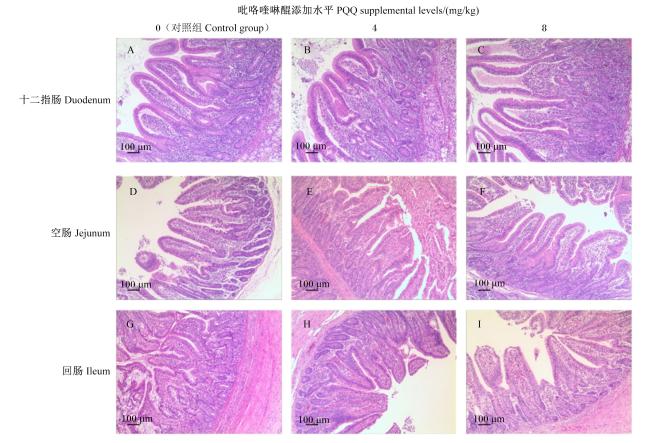
断奶仔猪十二指肠、空肠和回肠组织切片的光镜观察结果(图1)显示,各组断奶仔猪十二指肠均未发育完全且隐窝较深,对照组和4 mg/kg PQQ组十二指肠绒毛短小,隐窝丰富,肠腺不发达,杯状细胞极少,而8 mg/kg PQQ组十二指肠绒毛较长,隐窝丰富,肠腺较发达且可见杯状细胞;空肠中,对照组绒毛形态规整、排列有序,隐窝深度适中,4 mg/kg PQQ组空肠绒毛形态完整、排列整齐,隐窝分布均匀,8 mg/kg PQQ组空肠绒毛形态相对饱满、排列整齐,隐窝深度适中,肠腺结构清晰;回肠中,对照组和4 mg/kg PQQ组绒毛结构完整,隐窝清晰,8 mg/kg PQQ组绒毛形态饱满、排列有序,隐窝结构正常,肠腺及肌层等结构清晰。
图1 PQQ对断奶仔猪肠道形态结构的影响

Fig.1 Effects of PQQ on intestinal morphological structure of weaned piglets

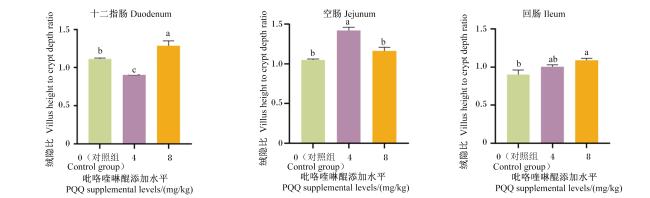
图2可知,8 mg/kg PQQ组十二指肠绒隐比显著高于对照组和4 mg/kg PQQ组(P<0.05),且对照组十二指肠绒隐比显著高于4 mg/kg PQQ组(P<0.05);4 mg/kg PQQ组空肠绒隐比显著高于对照组和8 mg/kg PQQ组(P<0.05);8 mg/kg PQQ组回肠绒隐比显著高于对照组(P<0.05)。
图2 PQQ对断奶仔猪肠道绒隐比的影响

数据柱形标注不同字母表示差异显著(P<0.05)。图3图6同。

Fig.2 Effects of PQQ on intestinal villus height to crypt depth ratio of weaned piglets

Value columns with different letters mean significant difference (P<0.05). The same as Fig.3 and Fig.6.

2.6 PQQ对断奶仔猪盲肠内容物SCFAs含量的影响

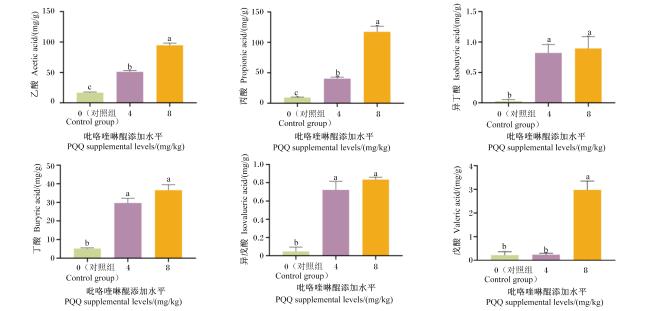
图3可知,与对照组相比,4和8 mg/kg PQQ组盲肠内容物乙酸、丙酸、异丁酸、丁酸和异戊酸含量显著提高(P<0.05),8 mg/kg PQQ组盲肠内容物戊酸浓度显著提高(P<0.05)。此外,8 mg/kg PQQ组盲肠内容物乙酸、丙酸和戊酸含量显著高于4 mg/kg PQQ组(P<0.05)。
图3 PQQ对断奶仔猪盲肠内容物SCFAs含量的影响

Fig.3 Effects of PQQ on SCFAs contents in cecal contents of weaned piglets

2.7 PQQ对断奶仔猪盲肠菌群的影响

2.7.1 盲肠菌群多样性

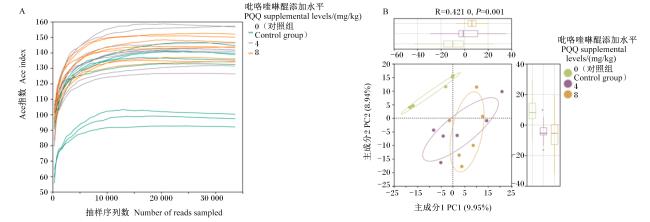
由盲肠菌群属水平Ace指数稀释曲线(图4-A)及扩增子序列变异(ASV)水平主成分分析(PCA)结果(图4-B)可知,饲粮中添加PQQ可以在属水平与ASV水平改变断奶仔猪盲肠菌群结构。
图4 盲肠菌群多样性分析

A:属水平盲肠菌群Ace指数稀释曲线;B:ASV水平盲肠菌群PCA图。

Fig.4 Diversity analysis of cecal microbiota

A: Ace index rarefaction curve of cecal microbiota at genus level; B: PCA plot of cecal microbiota at ASV level.

2.7.2 盲肠菌群组成及差异分析

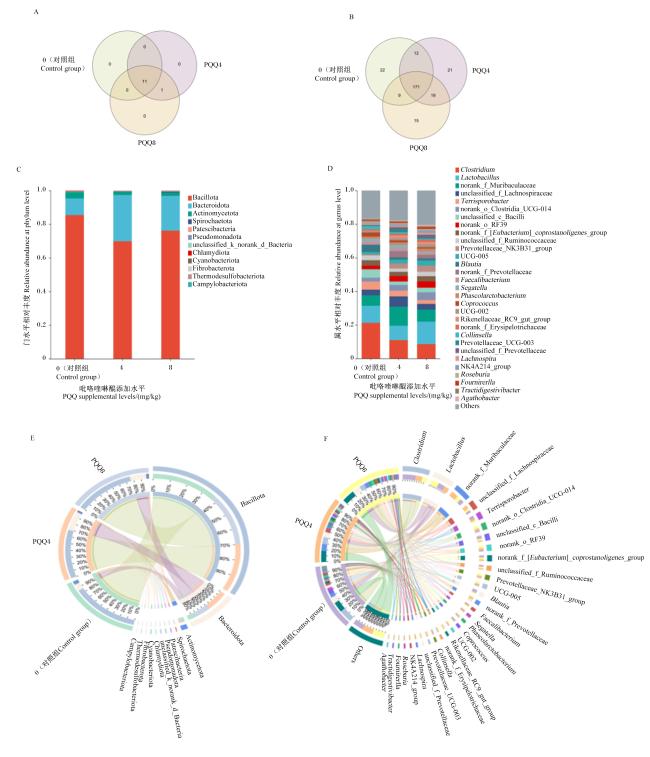
图5-A可知,3组盲肠菌群在门水平的共有物种极少(仅11个菌门),4和8 mg/kg PQQ组相较于对照组有1个特有菌门。由图5-B可知,4 mg/kg PQQ组有21个特有菌属,8 mg/kg PQQ组有15个特有菌属,4和8 mg/kg PQQ组相较于对照组共有55个特有菌属。由图5-C可知,3组盲肠菌群中相对丰度排名前10的菌门分别为厚壁菌门(Bacillota)、拟杆菌门(Bacteroidota)、放线菌门(Actinomycetota)、螺旋体门(Spirochaetota)、变形菌门(Pseudomonadota)、髌骨细菌门(Patescibacteria)、未分类界未定级门细菌(unclassified_k_norank_d_Bacteria)、衣原体门(Chlamydiota)、蓝细菌门(Cyanobacteriota)和纤维杆菌门(Fibrobacterota)。由图5-D可知,3组盲肠菌群中相对丰度排名前10的菌属分别为梭菌属(Clostridium)、乳杆菌属(Lactobacillus)、未定级鼠杆菌科(norank_f_Muribaculaceae)、未分类毛螺菌科(unclassified_f_Lachnospiraceae)、土孢杆菌属(Terrisporobacter)、未定级梭菌纲UCG-014(norank_o_Clostridia_UCG-014)、未分类芽孢杆菌纲(unclassified_c_Bacilli)、未定级RF39目(norank_o_RF39)、未定级产粪甾醇真杆菌群(norank_f_[Eubacterium]_coprostanoligenes_group)和未分类瘤胃球菌科(unclassified_f_Ruminococcaceae)。由图5-E可知,厚壁菌门为3组盲肠菌群中的优势菌门(相对丰度>50%),在对照组、4和8 mg/kg PQQ组相对丰度分别为85%、70%和76%。由图5-F可知,梭菌属和乳杆菌属为3组盲肠菌群中的优势菌属,对照组、4和8 mg/kg PQQ组盲肠梭菌属相对丰度分别为21%、11%和9%,乳杆菌属相对丰度分别为10%、9%和13%。
图5 盲肠菌群组成分析

A:门水平盲肠菌群Venn图;B:属水平盲肠菌群Venn图;C:门水平盲肠菌群组成柱形图;D:属水平盲肠菌群组成柱形图;E:门水平盲肠菌群Circos图;F:属水平菌群盲肠Circos图。A: Venn diagram of cecal microbiota at phylum level; B: Venn diagram of cecal microbiota at genus level; C: bar chart of cecal microbiota composition at phylum level; D: bar chart of cecal microbiota composition at genus level; E: Circos plot of cecal microbiota at phylum level; F: Circos plot of cecal microbiota at genus level.

PQQ4:4 mg/kg PQQ组 4 mg/kg PQQ group;PQQ8:8 mg/kg PQQ组 8 mg/kg PQQ group。Bacillota:厚壁菌门;Bacteroidota:拟杆菌门;Actinomycetota:放线菌门;Spirochaetota:螺旋体门;Pseudomonadota:变形菌门;Patescibacteria:髌骨细菌门;unclassified_k_norank_d_Bacteria:未分类界未定级门细菌;Chlamydiota:衣原体门;Cyanobacteriota:蓝细菌门;Fibrobacterota:纤维杆菌门;Thermodesulfobacteriota:热脱硫杆菌门;Campylobacteriota:弯曲杆菌门;Clostridium:梭菌属;Lactobacillus:乳杆菌属;norank_f_Muribaculaceae:未定级鼠杆菌科;unclassified_f_Lachnospiraceae:未分类毛螺菌科;Terrisporobacter:土孢杆菌属;norank_o_Clostridia_UCG-014:未定级梭菌纲UCG-014目;unclassified_c_Bacilli:未分类芽孢杆菌纲;norank_o_RF39:未定级RF39目;norank_f_[Eubacterium]_coprostanoligenes_group:未定级产粪甾醇真杆菌群;unclassified_f_Ruminococcaceae:未分类瘤胃球菌科;Prevotellaceae_NK3B31_group:普雷沃氏菌科NK3B31群;Blautia:布劳特氏菌属;norank_f_Prevotellaceae:未定级普雷沃氏菌科;Faecalibacterium:粪杆菌属;Phascolarctobacterium:考拉杆菌属;Coprococcus:粪球菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;norank_f_Erysipelotrichaceae:未定级丹毒丝菌科;Collinsella:柯林斯菌属;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;unclassified_f_Prevotellaceae:未分类普雷沃氏菌科;Lachnospira:毛螺菌属;NK4A214_group:NK4A214群;Roseburia:罗氏菌属;Others:其他。下图同 the same as below。

Fig.5 Composition analysis of cecal microbiota

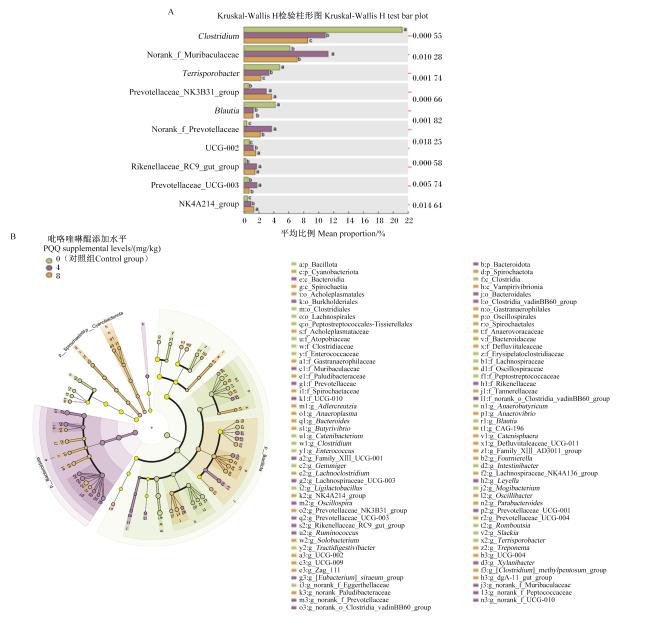
图6-A为基于Kruskal-Wallis H检验的属水平盲肠菌群差异分析柱形图,其中,4和8 mg/kg PQQ组盲肠梭菌属、土孢杆菌属和布劳特氏菌属(Blautia)相对丰度较对照组显著降低(P<0.05),盲肠普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B31_group)、未定级普雷沃氏菌科(norank_f_Prevotellaceae)、UCG-002、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)和NK4A214群(NK4A214_group)相对丰度较对照组显著提高(P<0.05)。图6-B为基于线性判别分析效应大小(LEfSe)分析得到的盲肠菌群门至属水平物种差异层级树图,其中,对照组盲肠菌群的差异类群集中在厚壁菌门下属的梭菌属等;4 mg/kg PQQ组盲肠菌群的差异类群集中在拟杆菌门下属的普雷沃氏菌科等;8 mg/kg PQQ组盲肠菌群的差异类群集中在厚壁菌门下属的乳杆菌属等。
图6 盲肠菌群物种差异分析

A:基于Kruskal-Wallis H检验的属水平差异分析柱形图;B:基于LEfSe分析的多级物种层级树图。A: bar chart of genus-level differential analysis based on Kruskal-Wallis H test; B: multi-level species hierarchical tree diagram based on LEfSe analysis.

Bacteroidia:拟杆菌纲;Clostridia:梭菌纲;Spirochaetia:螺旋体纲;Vampirivibrionia:吸血弧菌纲;Acholeplasmatales:无胆甾原体目;Bacteroidales:拟杆菌目;Burkholderiales:伯克霍尔德氏菌目;Clostridia_vadinBB60_group:梭菌纲vadinBB60群;Clostridiales:梭菌目;Gastranaerophilales:胃厌氧嗜温菌目;Lachnospirales:毛螺菌目;Oscillospiraales:颤螺旋菌目;Peptostreptococcales-Tissierellales:消化链球菌目-Tissierellales;Spirochaetales:螺旋体目;Acholeplasmataceae:无胆甾原体科;Anaerovoracaceae:厌氧食菌科;Atopobiaceae:阿托波菌科;Bacteroidaceae:拟杆菌科;Clostridiaceae:梭菌科;Defluviitaleaceae:河川菌科;Enterococcaceae:肠球菌科;Erysipelatoclostridiaceae:丹毒丝菌科;Gastranaerophilaceae:胃厌氧嗜温菌科;Lachnospiraceae:毛螺菌科;Muribaculaceae:鼠杆菌科;Oscillospiraceae:颤螺旋菌科;Paludibacteraceae:沼泽杆菌科;Peptostreptococcaceae:消化链球菌科;Prevotellaceae:普雷沃氏菌科;Rikenellaceae:理研菌科;Spirochaetaceae:螺旋体科;Tannerellaceae:坦纳菌科;Anaerobutyricum:厌氧丁酸菌属;Anaeroplasma:无胆甾原体属;Anaerovibrio:厌氧弧菌属;Butyrivibrio:丁酸弧菌属;Catenibacterium:链状杆菌属;Catenisphaera:链球属;Defluviitaleaceae_UCG-011:河川菌科UCG-011;Enterococcus:肠球菌属;Family_XⅢ_AD3011_group:XⅢ科AD3011群;Family_XⅢ_UCG-001:XⅢ科UCG-001群;Fournierella:富尔尼埃氏菌属;Gemmiger:芽殖菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Lachnospiraceae_UCG-003:毛螺菌科UCG-003;Ligilactobacillus:利吉尔乳杆菌属;Oscillibacter:颤杆菌属;Oscillospira:颤螺旋菌属;Parabacteroides:副拟杆菌属;Prevotellaceae_UCG-001:普雷沃氏菌科UCG-001;Prevotellaceae_UCG-004:普雷沃氏菌科UCG-004;Romboutsia:罗姆布茨菌属;Ruminococcus:瘤胃球菌属;Slackia:史雷克氏菌属;Tractidigestivibacter:消化管杆菌属;Treponema:密螺旋体属;Xylanibacter:木聚糖杆菌属;[Clostridium]_methylpentosum_group:甲基戊糖梭菌群;[Eubacterium]_siraeum_group:西雷姆真杆菌群;dgA-11_gut_group:dgA-11肠道群;norank_f_Eggerthellaceae:未定级埃格特菌科;norank_Paludibacteraceae:未定级沼泽杆菌科;norank_f_Peptococcaceae:未定级消化链球菌科;norank_f_UCG-010:未定级UCG-010科;norank_o_Clostridia_vadinBB60_group:未定级梭菌纲vadinBB60群。

Fig.6 Species difference analysis of cecal microbiota

2.8 血清和肝脏炎症、氧化损伤、抗氧化指标及盲肠SCFAs含量与盲肠菌群的相关性分析
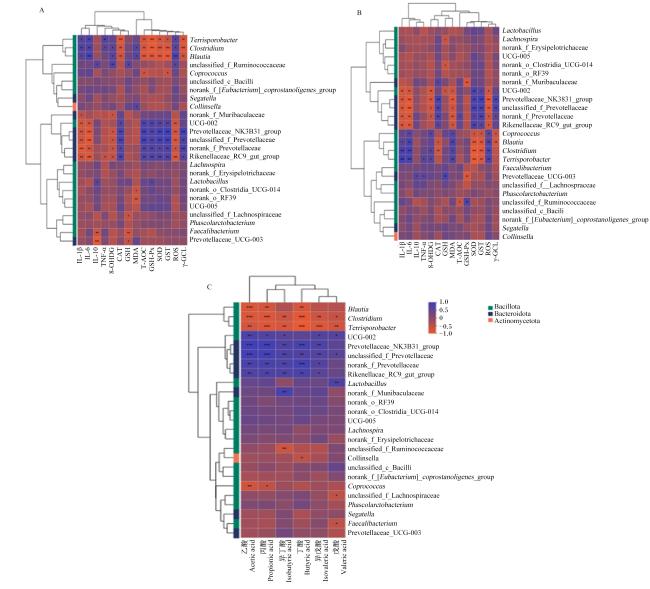
将血清和肝脏炎症、氧化损伤、抗氧化指标及盲肠SCFAs含量与盲肠菌群相对丰度进行Spearman相关性分析,结果如图7所示。由图7-A可知,盲肠土孢杆菌属、梭菌属和布劳特氏菌属功能相似,其相对丰度均与血清炎症指标中IL-1β、IL-6和TNF-α含量呈正相关,与血清氧化损伤指标中ROS和MDA含量呈正相关,与血清抗氧化指标中GST含量、CAT、GSH-Px、SOD、γ-GCL活性及T-AOC呈负相关;未分类瘤胃球菌科相对丰度与血清炎症指标中IL-10含量呈正相关,与血清抗氧化指标中GSH含量正相关,与血清氧化损伤指标中8-OHDG和ROS含量呈正相关;粪球菌属(Coprococcus)相对丰度与血清抗氧化指标中T-AOC和GST含量呈负相关;UCG-002、普雷沃氏菌科NK3B31群、未分类普雷沃氏菌科、未定级普雷沃氏菌科、理研菌科RC9肠道群功能相似,其相对丰度与血清炎症指标中IL-1β、IL-10和TNF-α含量呈负相关,与血清氧化损伤指标中ROS和8-OHDG含量呈负相关,与血清抗氧化指标中GST含量、CAT、GSH-Px、SOD、γ-GCL活性及T-AOC呈正相关。
图7 血清和肝脏炎症、氧化损伤、抗氧化指标及盲肠SCFAs含量与盲肠菌群的相关性分析

A:血清炎症、氧化损伤和抗氧化指标与盲肠菌群的相关性热图;B:肝脏炎症、氧化损伤和抗氧化指标与盲肠菌群的相关性热图;C:盲肠内容物SCFAs含量与盲肠菌群的相关性热图。A: heatmap of correlations between serum inflammation, oxidative damage, antioxidant indices and cecal microbiota; B: heatmap of correlations between liver inflammation, oxidative damage, antioxidant indices and cecal microbiota; C: heatmap of correlations between SCFAs contents in cecal contents and cecal microbiota.

IL-1β:白细胞介素-1β interleukin-1β;IL-6:白细胞介素-6 interleukin-6;IL-10:白细胞介素-10 interleukin-10;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;8-OHDG:8-羟基脱氧鸟苷 8-hydroxy deoxyguanosine;CAT:过氧化氢酶 catalase;GSH:还原型谷胱甘肽 glutathione;MDA:丙二醛 malondialdehyde;T-AOC:总抗氧化能力 total antioxidant capacity;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;SOD:超氧化物歧化酶 superoxide dismutase;GST:谷胱甘肽硫转移酶 glutathione S-transferase;ROS:活性氧 reactive oxygen species;γ-GCL:γ-谷氨酰半胱氨酸连接酶 γ-glutamylcysteine ligase。

*表示显著相关(P<0.05),**(P<0.01)和***(P<0.001)表示极显著相关。* means significant correlation (P<0.05), and ** (P<0.01) and *** (P<0.001) mean extremely significant correlation.

Fig.7 Correlation analysis between serum and liver inflammation, oxidative damage, antioxidant indices, cecal SCFAs contents and cecal microbiota

图7-B可知,盲肠UCG-002、普雷沃氏菌科NK3B31群、未分类普雷沃氏菌科、未定级普雷沃氏菌科、理研菌科RC9肠道群功能相似,其相对丰度与肝脏炎症指标中IL-1β和IL-10含量呈负相关,与肝脏氧化损伤指标中8-OHDG、ROS和MDA含量呈负相关,与肝脏抗氧化指标中GST含量及CAT、T-AOC、SOD、γ-GCL活性呈正相关;粪球菌属、布劳特氏菌属、梭菌属和土孢杆菌属功能相似,其相对丰度与肝脏炎症指标中IL-1β、IL-10、TNF-α含量呈正相关,与肝脏氧化损伤指标中8-OHDG、ROS和MDA含量呈正相关,与肝脏抗氧化指标中GST含量及CAT、SOD、γ-GCL活性呈负相关。
图7-C可知,盲肠布劳特氏菌属、梭菌属和土孢杆菌属功能相似,其相对丰度与盲肠内容物乙酸、丙酸、异丁酸、丁酸、异戊酸和戊酸含量呈负相关;UCG-002、普雷沃氏菌科NK3B31群、未分类普雷沃氏菌科、未定级普雷沃氏菌科和理研菌科RC9肠道群功能相似,其相对丰度与盲肠内容物乙酸、丙酸、异丁酸、丁酸、异戊酸和戊酸含量呈正相关。

3 讨论

PQQ已被证实具有促进生长、调节代谢、提高抗氧化酶活性及缓解自由基造成的氧化损伤等作用[9,11-12]。有研究表明,在断奶仔猪饲粮中添加3 mg/kg PQQ可有效提高其平均日增重并降低料重比[10]。本研究发现,饲粮中添加4和8 mg/kg PQQ同样可提高断奶仔猪的平均日增重并降低料重比,且与对照组相比,添加PQQ组的平均日采食量无显著变化。以上结果说明,PQQ对断奶仔猪生长性能的改善主要源于饲料转化效率的提高,而非通过增加采食量实现。
仔猪断奶应激会造成免疫功能抑制,并导致机体炎症及氧化水平升高[13-14]。断奶应激还会影响肠道结构,引起菌群紊乱与屏障功能破坏,从而限制营养吸收并抑制仔猪生长[15]。研究表明,PQQ能够调节细胞因子表达,抑制炎症反应[16]。本研究结果表明,饲粮中添加PQQ可显著降低血清和肝脏中促炎因子含量,同时提高抑炎因子含量,说明PQQ在缓解机体炎症反应方面具有潜在作用。已有报道指出,PQQ可能通过调控NF-κB和丝裂原活化蛋白激酶(MAPK)等信号通路,从而抑制炎症反应的发生与发展[17]。此外,氧化应激与炎症反应密切相关,降低氧化应激水平有助于减轻断奶仔猪的炎症反应[18]。研究表明,PQQ及其衍生物具有显著的抗氧化活性,其自由基清除能力约为维生素C的50~100倍[3]。在氧化应激过程中,过量的ROS可攻击细胞膜脂质,诱导脂质过氧化并生成MDA;同时,内源性ROS还可直接损伤DNA,而8-OHDG的含量则可反映DNA氧化损伤的程度。因此,ROS、MDA和8-OHDG常被用作评估机体氧化应激水平和细胞损伤程度[19-21]。本研究结果表明,饲粮中添加PQQ可使血清中氧化损伤指标含量呈下降趋势;添加8 mg/kg PQQ可显著降低肝脏8-OHDG、ROS和MDA含量,这与在蛋鸡[22]上的研究结果相似。在氧化应激细胞模型中证实,PQQ可促进线粒体合成并激活更多抗氧化酶,这些酶能高效清除细胞代谢产生的ROS,从而减轻氧化应激[16,23]。研究表明,PQQ可通过多种途径增强机体的抗氧化能力,包括提高抗氧化酶转录水平[24],以及与抗氧化酶结合并通过构象变化增强其活性[25]。机体内重要的抗氧化物GSH主要由γ-GCL催化生成,可作为辅酶参与GST的解毒反应[26-27];SOD、GSH-Px和CAT则具有清除氧自由基的功能[28]。本研究结果表明,饲粮中添加PQQ显著提高了血清和肝脏中多种抗氧化酶的活性。前人研究也表明,饲粮中添加PQQ可以提高初生仔猪和母猪血清SOD、GSH-Px等抗氧化酶活性,并能降低血清MDA含量[29];在肉鸡[9]的研究中也得到了相似结果。综上可知,PQQ可通过提高断奶仔猪血清及肝脏中抗氧化酶(SOD、GSH-Px、CAT、γ-GCL)的活性,增强机体抗氧化能力,从而减轻氧化损伤。
肠道作为消化系统的核心器官,在食物消化、营养吸收及维持机体健康中发挥着至关重要的作用[30]。肠道绒隐比是评估肠道黏膜形态和功能的重要指标[31]。已有研究证实,PQQ可通过激活AMPK信号通路增强细胞的能量代谢效率,进而促进动物生长发育[32]。本研究中,添加PQQ组表现出更高的肠道绒隐比,提示PQQ具有促进肠道发育的潜力。有研究表明,随着饲粮中PQQ添加水平的提升(0~7.5 mg/kg),断奶仔猪的十二指肠和空肠绒隐比逐渐增加[10],与本研究结果相似。PQQ还能改善断奶仔猪肠道结构,缓解肠道功能紊乱[33]。本研究还发现,饲粮中添加PQQ能显著提高断奶仔猪盲肠内容物中SCFAs的含量。SCFAs是肠道健康的重要标志物,其作为供能物质,在调节肠道上皮细胞的黏膜免疫中发挥关键作用,其生成主要依赖于肠道有益菌群的代谢活动[34-36],因此本试验进一步探究了肠道菌群的变化。PQQ在细菌中不仅是氧化还原酶的必需辅酶,还可通过调控代谢网络影响细菌的生存、定植及共生互作[37-38]。本研究结果表明,与对照组相比,添加PQQ组断奶仔猪盲肠菌群增加了1个特有门类和55个特有属,肠道菌群结构更为丰富。由肠道微生物构成的肠道屏障,是仔猪应对断奶应激的重要保护屏障[39]。本研究对菌属的多重比较结果表明,添加PQQ组盲肠梭菌属和土孢杆菌属相对丰度显著低于对照组。有报道指出,梭菌属中包含多种致病菌,如产气荚膜梭菌(Clostridium perfringens)、肉毒梭菌(Clostridium botulinum)等,可引发腹泻、坏死性肠炎等疾病,危害断奶仔猪肠道健康[40];土孢杆菌属也被报道与菌血症感染相关[41]。这些结果表明,仔猪在发生断奶应激时,感染此类致病菌的风险增加,而PQQ可通过降低肠道内有害菌的丰度,减少肠道疾病的发生。本研究结果还表明,饲粮中添加PQQ能显著提高盲肠普雷沃氏菌科NK3B31群、未定级普雷沃氏菌科、UCG-002、理研菌科RC9肠道群、普雷沃氏菌科UCG-003和NK4A214群相对丰度。雷沃氏菌科菌群能够参与胆汁代谢,具有降解膳食纤维并产生丙酸的功能[42-43];理研菌科RC9肠道群与肠道乙酸含量显著相关,可能通过调节乙酸代谢影响宿主的脂代谢和糖代谢[44-45];NK4A214群则可能与丙酸、丁酸的产生及生长性能的改善相关[46]。本研究中盲肠菌群LEfSe分析结果显示,饲粮中添加PQQ可使盲肠菌群的标志菌从梭菌属转变为普雷沃氏菌科和乳杆菌属等有益菌。小鼠试验表明,乳杆菌属可通过分解膳食纤维产生丁酸,促进肠道黏膜免疫细胞分化,增强抗炎能力[47-48]。乳杆菌属中罗伊氏乳杆菌(Lactobacillus reuteri)分泌的罗伊氏菌素(一种含α,β-不饱和醛的抗菌物质),可破坏细菌(如大肠杆菌、沙门氏菌)细胞膜,并抑制真菌(如白色念珠菌)生长[49]。综上可知,PQQ可通过降低断奶仔猪肠道中有害菌的相对丰度,提高有益菌的相对丰度,增强肠道屏障功能,减轻断奶应激所致的肠道紊乱与损伤。
在对断奶仔猪PQQ耐受性的研究中,饲粮中添加高达75.0 mg/kg PQQ对其生长性能未产生不良影响[10]。本研究中,添加PQQ组与对照组断奶仔猪的组织器官病理评分无显著差异,表明试验所用PQQ剂量不会对断奶仔猪组织器官造成不良影响,机体具有良好的耐受性。这一结果也支持了PQQ作为生长促进饲料添加剂应用于断奶仔猪养殖中的可行性。综合考量生长性能提升效果、抗炎抗氧化功能、肠道健康改善作用及成本效益,推荐断奶仔猪饲粮中PQQ添加剂量为4 mg/kg。该剂量既能通过调控血清与肝脏的抗氧化酶活性及肠道菌群平衡,有效缓解断奶应激,又兼具生产应用的经济性与安全性。

4 结论

饲粮中添加PQQ能够增强断奶仔猪血清与肝脏的抗氧化能力,促进肠道SCFAs的生成及优化菌群结构,进而提高其生长性能。基于本研究结果,建议断奶仔猪饲粮中PQQ添加剂量为4 mg/kg。
[1]
DING S J, CHENG Y T, AZAD M A K, et al. Development of small intestinal barrier function and underlying mechanism in Chinese indigenous and Duroc piglets during suckling and weaning periods[J]. Animal Nutrition, 2024, 16:429-442.

DOI PMID

[2]
SHI C Y, YU Z R, WANG Z J, et al. Dietary supplementation with pyrroloquinoline quinone promotes growth,relieves weaning stress,and regulates metabolism of piglets compared with adding zinc oxide[J]. Animal Nutrition, 2023, 15:409-419.

DOI

[3]
HE K, NUKADA H, URAKAMI T, et al. Antioxidant and pro-oxidant properties of pyrroloquinoline quinone (PQQ):implications for its function in biological systems[J]. Biochemical Pharmacology, 2003, 65(1):67-74.

DOI

[4]
JONSCHER K R, CHOWANADISAI W, RUCKER R B. Pyrroloquinoline-quinone is more than an antioxidant:a vitamin-like accessory factor important in health and disease prevention[J]. Biomolecules, 2021, 11(10):1441.

DOI

[5]
HUANG C Y, MING D X, WANG W H, et al. Pyrroloquinoline quinone alleviates jejunal mucosal barrier function damage and regulates colonic microbiota in piglets challenged with enterotoxigenic Escherichia coli[J]. Frontiers in Microbiology, 2020, 11:1754.

[6]
TAO R, KARLINER J S, SIMONIS U, et al. Pyrroloquinoline quinone preserves mitochondrial function and prevents oxidative injury in adult rat cardiac myocytes[J]. Biochemical and Biophysical Research Communications, 2007, 363(2):257-262.

DOI PMID

[7]
LIU L X, ZHANG Y Y, LIU T, et al. Pyrroloquinoline quinone protects against exercise-induced fatigue and oxidative damage via improving mitochondrial function in mice[J]. The FASEB Journal, 2021, 35(4):e21394.

DOI

[8]
JONSCHER K R, STEWART M S, ALFONSO-GARCIA A, et al. Early PQQ supplementation has persistent long-term protective effects on developmental programming of hepatic lipotoxicity and inflammation in obese mice[J]. The FASEB Journal, 2017, 31(4):1434-1448.

DOI

[9]
WANG J, ZHANG H J, SAMUEL K G, et al. Effects of dietary pyrroloquinoline quinone disodium on growth,carcass characteristics,redox status,and mitochondria metabolism in broilers[J]. Poultry Science, 2015, 94(2):215-225.

DOI

[10]
YIN X D, MING D X, BAI L L, et al. Effects of pyrroloquinoline quinone supplementation on growth performance and small intestine characteristics in weaned pigs[J]. Journal of Animal Science, 2019, 97(1):246-256.

DOI PMID

[11]
CHOWANADISAI W, BAUERLY K A, TCHAPARIAN E, et al. Pyrroloquinoline quinone stimulates mitochondrial biogenesis through cAMP response element-binding protein phosphorylation and increased PGC-1alpha expression[J]. The Journal of Biological Chemistry, 2010, 285(1):142-152.

DOI

[12]
ALKAHTANI S, ALARIFI S, ALKAHTANE A A, et al. Pyrroloquinoline quinone alleviates oxidative damage induced by high glucose in HepG2 cells[J]. Saudi Journal of Biological Sciences, 2021, 28(11):6127-6132.

DOI PMID

[13]
HAO Y, XING M J, GU X H. Research progress on oxidative stress and its nutritional regulation strategies in pigs[J]. Animals, 2021, 11(5):1384.

DOI

[14]
PIÉ S, LALLÈS J P, BLAZY F, et al. Weaning is associated with an upregulation of expression of inflammatory cytokines in the intestine of piglets[J]. The Journal of Nutrition, 2004, 134(3):641-647.

DOI

[15]
QIN L S, JI W, WANG J L, et al. Effects of dietary supplementation with yeast glycoprotein on growth performance,intestinal mucosal morphology,immune response and colonic microbiota in weaned piglets[J]. Food & Function, 2019, 10(5):2359-2371.

[16]
CHARRIER D, CERULLO G, CARPENITO R, et al. Metabolic and biochemical effects of pyrroloquinoline quinone (PQQ) on inflammation and mitochondrial dysfunction:potential health benefits in obesity and future perspectives[J]. Antioxidants, 2024, 13(9):1027.

DOI

[17]
YANG C F, YU L F, KONG L B, et al. Pyrroloquinoline quinone (PQQ) inhibits lipopolysaccharide induced inflammation in part via downregulated NF-κB and p38/JNK activation in microglial and attenuates microglia activation in lipopolysaccharide treatment mice[J]. PLoS One, 2014, 9(10):e109502.

DOI

[18]
MARIN D E, PISTOL G C, NEAGOE I V, et al. Effects of zearalenone on oxidative stress and inflammation in weanling piglets[J]. Food and Chemical Toxicology, 2013, 58:408-415.

DOI PMID

[19]
ANJUM N A, GILL S S, DUARTE A C, et al. Oxidative stress biomarkers and antioxidant defense in plants exposed to metallic nanoparticles[M]//HUSEN A,IQBAL M. Nanomaterials and plant potential. Cham: Springer, 2019:427-439.

[20]
HALLIWELL B, CHIRICO S. Lipid peroxidation:its mechanism,measurement,and significance[J]. The American Journal of Clinical Nutrition, 1993, 57(S5):715S-725S.

[21]
GRAILLE M, WILD P, SAUVAIN J J, et al. Urinary 8-OHDG as a biomarker for oxidative stress:a systematic literature review and Meta-analysis[J]. International Journal of Molecular Sciences, 2020, 21(11):3743.

DOI

[22]
QIU K, ZHAO Q, WANG J, et al. Effects of pyrroloquinoline quinone on lipid metabolism and anti-oxidative capacity in a high-fat-diet metabolic dysfunction-associated fatty liver disease chick model[J]. International Journal of Molecular Sciences, 2021, 22(3):1458.

DOI

[23]
GAO Y, KAMOGASHIRA T, FUJIMOTO C, et al. Pyrroloquinoline quinone (PQQ) protects mitochondrial function of HEI-OC1 cells under premature senescence[J]. NPJ Aging, 2022, 8(1):3.

DOI PMID

[24]
YAN T D, NISAR M F, HU X M, et al. Pyrroloquinoline quinone (PQQ):exploring its impact on human health and potential benefits[J]. Current Research in Food Science, 2024, 9:100889.

[25]
MA K, CUI J Z, YE J B, et al. Pyrroloquinoline quinone from Gluconobacter oxydans fermentation broth enhances superoxide anion-scavenging capacity of Cu/Zn-SOD[J]. Food Chemistry, 2017, 230:291-294.

DOI

[26]
LU S C. Regulation of glutathione synthesis[J]. Molecular Aspects of Medicine, 2009, 30(1/2):42-59.

DOI

[27]
GEORGIOU-SIAFIS S K, TSIFTSOGLOU A S. The key role of GSH in keeping the redox balance in mammalian cells:mechanisms and significance of GSH in detoxification via formation of conjugates[J]. Antioxidants, 2023, 12(11):1953.

DOI

[28]
MA X, DENG D, CHEN W. Inhibitors and activators of SOD,GSH-Px,and CAT[J]. Enzyme Inhibitors and Activators, 2017, 29:207-224.

[29]
ZHANG B R, WANG C X, YANG W, et al. Transcriptome analysis of the effect of pyrroloquinoline quinone disodium (PQQ·Na2) on reproductive performance in sows during gestation and lactation[J]. Journal of Animal Science and Biotechnology, 2019, 10:62.

DOI

[30]
MAGEE H E. The role of the small intestine in nutrition[J]. Physiological Reviews, 1930, 10(3):473-505.

DOI

[31]
KWON O, HAN T S, SON M Y. Intestinal morphogenesis in development,regeneration,and disease:the potential utility of intestinal organoids for studying compartmentalization of the crypt-villus structure[J]. Frontiers in Cell and Developmental Biology, 2020, 8:593969.

[32]
MOHAMAD ISHAK N S, IKEMOTO K. Pyrroloquinoline-quinone to reduce fat accumulation and ameliorate obesity progression[J]. Frontiers in Molecular Biosciences, 2023, 10:1200025.

[33]
MING D X, HUANG C Y, WANG W H, et al. Effects of diet supplemented with excess pyrroloquinoline quinone disodium on growth performance,blood parameters and redox status in weaned pigs[J]. Animals, 2021, 11(2):359.

DOI

[34]
XIONG R G, ZHOU D D, WU S X, et al. Health benefits and side effects of short-chain fatty acids[J]. Foods, 2022, 11(18):2863.

DOI

[35]
PARADA VENEGAS D, DE LA FUENTE M K, LANDSKRON G, et al. Short chain fatty acids (SCFAs)-mediated gut epithelial and immune regulation and its relevance for inflammatory bowel diseases[J]. Frontiers in Immunology, 2019, 10:277.

DOI PMID

[36]
LUU M, VISEKRUNA A. Short-chain fatty acids:bacterial messengers modulating the immunometabolism of T cells[J]. European Journal of Immunology, 2019, 49(6):842-848.

DOI

[37]
DUINE J A, JONGEJAN J A. Quinoproteins, enzymes with pyrrolo-quinoline quinone as cofactor[J]. Annual Review of Biochemistry, 1989, 58:403-426.

DOI

[38]
NAVEED M, TARIQ K, SADIA H, et al. The life history of pyrroloquinoline quinone (PQQ):a versatile molecule with novel impacts on living systems[J]. Molecular Biology, 2016, 1(1):29-46.

[39]
TANG X P, XIONG K N, FANG R J, et al. Weaning stress and intestinal health of piglets:a review[J]. Frontiers in Immunology, 2022, 13:1042778.

[40]
BAKER A A, DAVIS E, REHBERGER T, et al. Prevalence and diversity of toxigenic Clostridium perfringens and Clostridium difficile among swine herds in the midwest[J]. Applied and Environmental Microbiology, 2010, 76(9):2961-2967.

DOI

[41]
SHAH M, AHMED M W, OLOWOYO O, et al. Terrisporobacter glycolicus bacteremia in a patient with cirrhosis[J]. Consultant, 2022, 62(11):e8.

[42]
CHEN L P, YE Z H, LI J, et al. P0201 gut bacteria Prevotellaceae related lithocholic acid metabolism promotes colonic inflammation[J]. Journal of Translational Medicine, 2025, 19(S1):i605.

[43]
CHEN L P, YE Z H, LI J H, et al. Gut bacteria Prevotellaceae related lithocholic acid metabolism promotes colonic inflammation[J]. Journal of Translational Medicine, 2025, 23(1):55.

DOI PMID

[44]
DEN BESTEN G, VAN EUNEN K, GROEN A K, et al. The role of short-chain fatty acids in the interplay between diet,gut microbiota,and host energy metabolism[J]. Journal of Lipid Research, 2013, 54(9):2325-2340.

DOI

[45]
YANG C, LIU B, PAN L K, et al. Impact of soybean bioactive peptides on growth,lipid metabolism,antioxidant ability,molecular responses,and gut microbiota of oriental river prawn (Macrobrachium nipponense) fed with a low-fishmeal diet[J]. Biology, 2025, 14(1):11.

DOI

[46]
WANG D D, TANG G F, WANG Y N, et al. Rumen bacterial cluster identification and its influence on rumen metabolites and growth performance of young goats[J]. Animal Nutrition, 2023, 15:34-44.

DOI PMID

[47]
SEO H, SEONG H, KIM G Y, et al. Development of anti-inflammatory probiotic Limosilactobacillus reuteri EFEL6901 as kimchi starter:in vitro and in vivo evidence[J]. Frontiers in Microbiology, 2021, 12:760476.

[48]
LESER T, BAKER A. Molecular mechanisms of Lacticaseibacillus rhamnosus,LGG probiotic function[J]. Microorganisms, 2024, 12(4):794.

DOI

[49]
CLEUSIX V, LACROIX C, VOLLENWEIDER S, et al. Inhibitory activity spectrum of reuterin produced by Lactobacillus reuteri against intestinal bacteria[J]. BMC Microbiology, 2007, 7:101.

DOI

Outlines

/