RESEARCH PAPER

Effects of in Ovo Feeding of Leucine on Skeletal Muscle Myogensis of Arbor Acres Broilers

  • SUN Mingfa , 1 ,
  • WANG Qiuyue 1 ,
  • LI Yuxuan 1 ,
  • SUN Yushan 1 ,
  • LIU Siyi 1 ,
  • YING Yingbing 2 ,
  • HAN Min 1 ,
  • WANG Haiying 1 ,
  • QIAN Xintong 1 ,
  • YANG Yan 3 ,
  • HU Xiyi , 1, ** ,
  • LYU Shenjin , 1, **
Expand
  • 1 College of Agriculture and Forestry Science, Linyi University, Linyi 276000, China
  • 2 International School of Bioresource Application, Linyi University, Linyi 276000, China
  • 3 Linyi Academy of Agricultural Science, Linyi 276000, China
** HU Xiyi, associate professor, E-mail: ;
LYU Shenjin, professor, E-mail:

*Contributed equally

Received date: 2025-07-14

  Online published: 2026-01-13

Abstract

This study aimed to evaluate the effects of in ovo feeding of leucine (Leu) on hatching performance, organ indexes and myofiber indices, myogenesis related genes expression and metabolome in pectoralis major muscle of Arbor Acres (AA) broilers during embryonic stage. Following a pre-trial to determine the optimal embryonic age and dosage for injection, a formal trial was conducted. A total of 288 embryos of AA broilers were randomly divided into 3 groups with 8 replicates per group and 12 embryos per replicate. The injection experiment was conducted at 6 embryonic days, the negative control (NC) group received no injection, the positive control (PC) group was injected with 200 μL of 0.9% sodium chloride (NaCl) solution, and the Leu group was injected with 200 μL 4.0 mg/mL Leu solution. The results showed as follows: 1) the optimal injection embryonic age for in ovo feeding of Leu was at 6 embryonic days, and the optimal injection dosage was 200 μL 4.0 mg/mL Leu solution. 2) The breast muscle weight and breast muscle rate at 15, 17 and 19 embryonic days of the Leu group were significantly higher than those of NC group and PC group (P<0.05), the femur wight, tibia weight, jejunum weight and jejunum index at hatch were significantly higher than those of NC group and PC group (P<0.05), and the cross-sectional area of myofiber and diameter of myofiber in pectoralis major muscle at 19 embryonic days were significantly higher than those of NC group and PC group (P<0.05). 3) The mRNA relative expression levels of mammal target of rapamycin complex 1 (mTORC1), ribosomal P70S6 kinase (P70S6K), and peroxisome proliferator activated receptor γ coactivator 1α (PGC1α) in pectoralis major muscle at 15 embryonic days of the Leu group were significantly higher than those of NC group and PC group (P<0.05), the mRNA relative expression level of myogenin (MyoG) in pectoralis major muscle at 15 embryonic days was significantly higher than that of NC group and PC group (P<0.05), the mRNA relative expression levels of MyoG and myogenic regulatory factors 4 (MRF4) in pectoralis major muscle at hatch were significantly higher than those of NC group and PC group (P<0.05), and the mRNA relative expression level of myostatin (MSTN) in pectoralis major muscle at 15 embryonic days was significantly lower than that of the NC group (P<0.05). 4) Compared with the NC group, the relative abundances of threonine (Thr)-Leu-tyrosine (Tyr), phosphocreatine (PCr) and histidine (His) et al in pectoralis major muscle of the Leu group were significantly up-regulated (P<0.05), while the relative abundances of S-adenosylmethionine (SAM), glutamic acid (Glu) and methionine (Met) et al were significantly down-regulated (P<0.05). Furthermore, the in ovo feeding of Leu changed the pathways, including nucleotide metabolism, sulfur metabolism, pentose phosphate pathway, histidine metabolism, glycerophospholipid metabolism, cysteine and methionine metabolism, arginine and proline metabolism, as well as apoptosis and necroptosis et al. In conclusion, the in ovo feeding of Leu during the early embryonic stage promote the protein synthesis and cell proliferation and differentiation in pectoral muscle, change the amino acid and nucleotide metabolism in skeletal muscle, which is beneficial to skeletal muscle development.

Cite this article

SUN Mingfa , WANG Qiuyue , LI Yuxuan , SUN Yushan , LIU Siyi , YING Yingbing , HAN Min , WANG Haiying , QIAN Xintong , YANG Yan , HU Xiyi , LYU Shenjin . Effects of in Ovo Feeding of Leucine on Skeletal Muscle Myogensis of Arbor Acres Broilers[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 302 -319 . DOI: 10.12418/CJAN2026.024

我国肉鸡产业发展迅速,鸡肉已成为我国居民的第二大肉类食品。根据中国畜牧业协会监测数据显示,2024年肉鸡总出栏量达148.42亿只,比2023年增加了18.2亿只。在肉鸡生产中,孵化期约占整个生命周期的1/3,随着饲料营养、遗传选育和疾病防控等技术的进步,肉鸡的生长速度加快,出栏时间不断提前。孵化期在肉鸡生命周期中的比重不断增加,因此其重要性与之俱增。胚蛋给养是指将外源营养液注射到家禽胚蛋中的早期营养供给方式,该技术起源于鸡胚的免疫接种技术[1]。目前在美国,超过90%的肉鸡孵化场采用胚蛋注射机,此机器每小时可接种2.5万~6.2万枚胚蛋[2]。胚蛋给养将家禽早期营养调控提前至胚胎发育时期,是一项极具应用前景的新技术。
在肉鸡胚胎期,骨骼肌在13~15胚龄时快速发育,在17胚龄时肌纤维的形成基本完成[3]。随着家禽胚胎期骨骼肌的生长,生肌调控因子(myogenic regulatory factors,MRFs)相关基因的mRNA相对表达水平与胚胎期体重、胸肌增重、腿肌增重等指标均呈显著负相关[4]。由此可见,骨骼肌肌肉生成能力随着胚龄的增加而逐渐下降,在孵化早期进行营养供给可能对肉鸡胚胎期肌肉生成的调控效果更佳。亮氨酸(leucine,Leu)是家禽体内的必需氨基酸,有研究发现,胚蛋注射Leu改变了热应激肉鸡氨基酸代谢水平,降低了胸肌热休克蛋白70(HSP70)和热休克蛋白90(HSP90)的mRNA相对表达水平,增加了血清谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性,提高了抗氧化能力[5-6]。然而在肉鸡孵化早期,胚蛋给养Leu对骨骼肌肌肉生成的影响尚未见相关报道。因此,本研究以爱拔益加(AA)肉鸡胚蛋为研究对象,通过胚蛋注射技术确定孵化早期注射Leu的适宜胚龄和剂量,并通过测定胚胎期和出壳时胸肌率、腿肌率、器官指数、胸大肌肌肉生成相关基因表达和代谢组差异水平,探究孵化早期胚蛋给养Leu对肉鸡骨骼肌肌肉生成的影响。

1 材料与方法

1.1 伦理声明

本试验中动物使用方案经临沂大学实验动物伦理委员会批准(批准号:20230104)。

1.2 孵化管理

试验用AA商品代肉鸡受精蛋购自山东益客种禽有限公司。入孵前对种蛋进行照蛋透视,剔除裂纹蛋、肉斑蛋、血斑蛋以及气室不正、气室破裂、气室游离的种蛋。使用孵化器(2000型,北京海江孵化设备制造有限公司)按照种蛋正常孵化程序进行孵化,每120 min进行1次翻蛋,每次翻蛋时间为180 s,翻蛋角度为水平位置前俯后仰45°。孵化至4胚龄时,检查并清除未受精蛋;孵化至16胚龄时,再次检查并清除死胚;孵化至19胚龄时,停止翻蛋,将种蛋转移至出雏筐,直至出雏结束。孵化室环境温度保持在22~26 ℃。

1.3 胚蛋注射

试验开始前准备注射液,配制注射液所需的物品均经灭菌锅(MLS-3780型,日本三洋电子有限公司)高压灭菌处理,且保证配制注射液过程在严格无菌的环境下进行。配制好的注射液经0.22 μm无菌滤器过滤除菌后,置于37 ℃恒温培养箱中2 h。通过照蛋确定气室部位,在胚蛋的钝端用75%酒精消毒,用小型电钻机(钻头直径为1 mm)在气室端钻直径约1 mm的小孔。用1 mL的无菌注射器从所钻小孔中垂直进针(进针深度约为0.5 cm),将注射液缓慢地注入到胚蛋气室中,胚蛋注射操作在2 h内完成,且保证注射过程在无菌环境下进行。注射完毕后,立即用石蜡封闭蛋孔,并转移至孵化器中,按照正常程序进行孵化。

1.4 试验设计

1.4.1 预试验:胚蛋给养Leu适宜注射条件的确定

选取重量(约63.8 g)相近和发育正常的AA肉鸡胚蛋312枚,分别在6、8和10胚龄时进行胚蛋注射预试验。负对照组(NC组)未进行注射;在6、8和10胚龄时,正对照组(PC组)注射0.9%氯化钠(NaCl)溶液200 μL,Leu组分别注射1.0、2.0和4.0 mg/mL的Leu溶液各200 μL。预试验共计13个组,每组8个重复,每个重复3枚胚蛋。肉鸡出壳时(出壳后约2 h,羽毛干燥后采样),每组随机挑选接近平均体重的雏鸡各8只,颈部错位方式处死。称取出壳体重(含卵黄囊)、胸肌重、腿肌重和肝脏重,统计分析孵化率、健雏率、胸肌率、腿肌率和肝脏指数,确定适宜的胚蛋注射条件。相关计算公式如下:
孵化率(%)=(总雏鸡数/总胚蛋数)×100;
健雏率(%)=(健康雏鸡数/总雏鸡数)×100;
胸肌率(%)=(胸肌重/出壳体重)×100;
腿肌率(%)=(腿肌重/出壳体重)×100;
肝脏指数(%)=(肝脏重/出壳体重)×100。

1.4.2 胚蛋注射Leu试验

按照1.4.1预试验中确定的适宜胚龄和注射浓度条件开展正式试验。选取重量相近(约63.4 g)和发育正常的AA肉鸡胚蛋288枚。在6胚龄时进行注射试验,NC组未进行注射,PC组注射0.9%氯化钠(NaCl)溶液200 μL,Leu组注射4.0 mg/mL的Leu溶液200 μL。每组8个重复,每个重复12枚胚蛋,按照1.3所述方法进行胚蛋注射。

1.5 样品采集和指标测定

每组分别在肉鸡15、17、19胚龄和出壳时随机挑选接近平均蛋重(体重)的鸡胚(雏鸡)各8只,分别称取不同胚龄蛋重、体重(含卵黄囊)和卵黄囊重,出壳后统计分析孵化率和健雏率,颈部错位方式处死,分离胸肌、腿肌、肝脏、胫骨、股骨、十二指肠、空肠和回肠称重。采集两侧胸大肌组织样品,装入冻存管中,液氮速冻,-80 ℃保存待测。测定胸肌率、腿肌率、器官指数、胸大肌肌纤维指标、肌肉生成相关基因表达以及代谢组学。孵化率和健雏率的计算公式同1.4.1,胸肌率、腿肌率和器官指数的计算公式如下:
胸肌率(%)=(胸肌重/胚重)×100;
腿肌率(%)=(腿肌重/胚重)×100;
器官指数(%)=(器官重/胚重)×100。

1.6 胸大肌肌纤维指标测定

选取19胚龄鸡胚左侧胸大肌组织样品,置于4%多聚甲醛溶液中固定,然后进行苏木精-伊红(HE)染色,染色后的肌纤维切片在电子显微镜(CK-40型,日本Olympus公司,200×)下观察和拍照。通过Image J软件进行肌纤维横截面面积和肌纤维直径统计。

1.7 RNA提取和实时定量PCR

采用Trizol法分别从15胚龄鸡胚和出壳时雏鸡的左侧胸大肌(约100 mg)中分离提取总RNA,0.8%琼脂糖凝胶电泳检测RNA的完整性,用核酸分光光度计(UV-2450型,日本岛津公司)检测RNA浓度值(300~800 ng/μL)和吸光度(OD)260/OD280值。根据反转录试剂盒(04897030001,美国Roche公司)的试验操作说明,将总RNA的浓度统一调整为1 000 ng,配制20 μL的反转录体系,采用一步法反转录获得cDNA。反转录结束后,cDNA样品置于-20 ℃保存。实时定量PCR采用PCR仪(QS1型,美国ABI公司)进行操作,按照试剂盒说明书,采用SYBR Green Ⅰ染料法,构建20 μL的反应体系进行试验。目的基因序列从NCBI上查找获得,通过Primer 6设计得到引物序列,并经过Oligo验证引物,由上海生工生物工程有限公司合成,引物序列见表1。甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,目的基因包括哺乳动物雷帕霉素靶蛋白复合体1(mammal target of rapamycin complex 1,mTORC1)、核糖体P70S6激酶(ribosomal P70S6 kinase,P70S6K)、胰岛素样生长因子1(insulin like growth factor 1,IGF1)、过氧化物酶体增殖物激活受体γ共激活因子1α(peroxisome proliferator activated receptor γ coactivator 1α,PGC1α)、配对盒转录因子3(paired box protein 3,PAX3)、配对盒转录因子7(paired box protein 7,PAX7)、肌分化因子(myogenic differentiation,MyoD)、肌细胞生成素(myogenin,MyoG)、生肌调节因子4(myogenic regulatory factors 4,MRF4)、肌肉环指因子1(muscle ring finger 1,MuRF1)、萎缩素第一型基因(atrophy F box 1,Atrogin1)、肌肉生长抑制素(myostatin,MSTN)和叉头框蛋白O1(forkhead box protein O1,FoXO1),取对应的Ct值的平均值进行分析,采用2-ΔΔCt法计算目的基因的mRNA相对表达水平。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
哺乳动物雷帕霉素靶蛋白复合体1
mTORC1
F:GAAGTCCTGCGCGAGCATAAG
R:TTTGTGTCCATCAGCCTCCAGT
核糖体P70S6激酶
P70S6K
F:ATTCGATCACCTCGCAGATTCATAG
R:AGTATTTGATGCGCTGGCAGAAG
胰岛素样生长因子1
IGF1
F:TGTACTGTGCTCCAATAAAGC
R:CTGTTTCCTGTGTTCCCTCTACTTG
过氧化物酶体增殖物激活受体γ共激活因子1α
PGC1α
F:GACTCAGGTGTCAATGGAAGTG
R:ATCAGAACAAGCCCTGTGGT
配对盒转录因子3
PAX3
F:GAGCATCAGCAGCCCAGTCT
R:TGTCAGGGTAGTGTGTCCTCTCA
配对盒转录因子7
PAX7
F:AGGCTGACTTCTCCATCTCTCCT
R:TGTAACTGGTGGTGCTGTAGGTG
肌分化因子
MyoD
F:GGAGAGGATTTCCACAGACAACTC
R:CTCCACTGTCACTCAGGTTTCCT
肌细胞生成素
MyoG
F:GCTCTTTGAGACCAACCCTTACTT
R:GTCCAGTCCTTCTCCTCCAAA
生肌调节因子4
MRF4
F:GCGCCATCAGCTACATCGA
R:GCATTTTGTCCTGCTGATCCA
肌肉环指因子1
MuRF1
F:GCCAAGCAGCTCATTAAAACG
R:CATGTTCTCATAGCCTTGCTCAAT
萎缩素第一型基因
Atrogin1
F:AGGCCGCAGTGTGTTGTTCT
R:GTGTGAATGGCTGGTTGCAT
肌肉生长抑制素
MSTN
F:GCTTTTGATGAGACTGGACGAG
R:AGCGGGTAGCGACAACATC
叉头框蛋白O1
FoXO1
F:TCTGGTCAGGAGGGAAATGG
R:GCTTGCAGGCCACTTTGAG
甘油醛-3-磷酸脱氢酶
GAPDH
F:ACATGGCATCCAAGGAGTGAG
R:GGGGAGACAGAAGGGAACAGA

1.8 胸大肌代谢组学分析

选取19胚龄NC组和Leu组鸡胚右侧胸大肌组织样品进行提取液处理,经HSS T3色谱柱(Waters Corporation,美国)分离后进入超高效液相色谱串联傅里叶变换质谱系统(Thermo Fisher Scientific,美国),采用正负离子扫描模式进行样品质谱信号采集。上机完成后,液相色谱与质谱联用(LS-MS)原始数据导入代谢组学处理软件Progenesis QI(Waters Corporation,美国)得到代谢物信息。采用ropls包对数据矩阵进行主成分分析(PCA)和正交最小偏二乘判别分析(OPLS-DA),基于OPLS-DA模型得到变量投影重要性(variable importance in projection,VIP)值和t检验P值,确定差异代谢物(VIP>1和P<0.05),通过KEGG数据库进行代谢通路注释,获得差异代谢通路。Python软件包进行通路富集分析,并经Fisher精确检验相关的生物学途径。样品代谢物的提取、预处理、上机检测、质谱检测条件以及原始数据的处理均由上海美吉生物医药科技有限公司完成。

1.9 统计分析

数据采用SPPS 27.0统计软件ANOVA程序进行分析,双因素ANOVA模型用于分析不同注射胚龄和不同剂量的Leu对出壳时肉鸡孵化性能、体重、胸肌率和腿肌率的调控效应及其交互效应,单因素ANOVA模型用于分析胚蛋注射Leu对不同胚龄肉鸡体重、胸肌率、腿肌率、器官指数、胸大肌肌纤维指标、肌肉生成相关基因表达以及差异代谢物水平的影响。采用Duncan氏法进行多重比较,试验数据用平均值±标准差(mean±SD)表示,P<0.05为差异显著。

2 结果

2.1 胚蛋给养Leu适宜注射条件的确定

表2可知,不同注射胚龄和不同剂量的Leu对肉鸡孵化率、健雏率和出壳重均无显著影响(P>0.05)。不同注射胚龄对胸肌重、胸肌率、腿肌重和腿肌率均存在显著影响(P<0.05)。此外,注射胚龄和Leu剂量对胸肌率存在显著的交互效应(P<0.05)。6胚龄注射时,2.0和4.0 mg/mL Leu组胸肌重显著高于NC组和PC组(P<0.05),4.0 mg/mL Leu组胸肌率显著高于NC组和PC组(P<0.05),PC组及2.0、4.0 mg/mL Leu组肝脏重显著低于NC组(P<0.05);10胚龄注射时,PC组及1.0、4.0 mg/mL Leu组肝脏重和肝脏指数显著低于NC组(P<0.05)。综合上述结果,选择6胚龄注射200 μL 4.0 mg/mL的Leu进行后续试验。
表2 胚蛋给养Leu适宜注射条件的确定

Table 2 Determination of optimal injection conditions for in ovo feeding of Leu

项目
Items
注射胚龄
Injection
embryonic age
组别Groups PP-value
NC PC 1.0 mg/mL
Leu
2.0 mg/mL
Leu
4.0 mg/mL
Leu
注射胚龄
Injection
embryonic
age
处理
Treatment
注射胚龄×处理
Injection
embryonic age×
treatment
孵化率
Hatchability/%
6 91.50±5.56 87.38±8.83 91.50±5.56 83.13±8.99 95.75±4.25 0.737 0.451 0.511
8 91.50±5.56 74.88±12.26 95.75±4.25 95.75±4.25 74.88±12.26
10 91.50±5.56 83.25±10.97 87.38±8.83 95.75±4.25 91.50±5.56
健雏率
Rate of healthy chicks/%
6 95.75±4.25 91.50±5.56 95.75±4.25 91.50±5.56 95.75±4.25 0.788 0.465 0.990
8 95.75±4.25 87.25±6.22 91.50±5.56 95.75±4.25 87.38±8.83
10 95.75±4.25 87.38±8.83 95.75±4.25 91.50±5.56 87.38±8.83
出壳重
Hatch weight/g
6 39.37±1.68 38.84±2.76 40.71±2.65 41.56±4.54 38.00±2.93 0.513 0.465 0.122
8 39.37±1.68 38.75±3.76 38.83±4.23 39.86±3.40 42.95±6.00
10 39.37±1.68 41.73±3.22 39.40±3.22 40.70±2.89 41.44±2.94
胸肌重
Breast muscle weight/g
6 0.37±0.03b 0.38±0.06b 0.37±0.07b 0.46±0.09a 0.47±0.04a 0.017 0.298 0.069
8 0.37±0.03 0.33±0.05 0.38±0.10 0.37±0.05 0.36±0.08
10 0.37±0.03 0.42±0.08 0.42±0.10 0.38±0.10 0.40±0.09
胸肌率
Breast muscle rate/%
6 0.94±0.10bc 0.97±0.06bc 0.92±0.07c 1.10±0.21ab 1.25±0.09a 0.004 0.582 0.003
8 0.94±0.10 0.92±0.12 0.98±0.06 0.92±0.04 0.81±0.14
10 0.94±0.10 1.00±0.17 1.07±0.06 0.94±0.09 0.97±0.21
腿肌重
Thigh muscle weight/g
6 3.30±0.29 3.21±0.23 3.38±0.33 3.36±0.34 3.22±0.25 0.014 0.932 0.557
8 3.26±0.29 3.11±0.47 3.07±0.50 3.07±0.27 3.23±0.60
10 3.30±0.29 3.49±0.40 3.30±0.42 3.42±0.35 3.61±0.53
腿肌率
Thigh muscle rate/%
6 8.39±1.00 8.29±0.59 8.30±0.66 8.10±0.40 8.50±0.83 0.014 0.781 0.728
8 8.39±1.00 8.02±0.85 7.90±0.95 7.72±0.70 7.33±1.13
10 8.39±1.00 8.38±0.71 8.37±0.74 8.42±0.96 8.69±0.92
肝脏重
Liver weight/g
6 0.80±0.09a 0.67±0.13b 0.70±0.07ab 0.66±0.11b 0.67±0.11b 0.121 <0.001 0.456
8 0.80±0.09 0.72±0.10 0.67±0.11 0.72±0.09 0.77±0.09
10 0.80±0.09a 0.61±0.08b 0.67±0.06b 0.72±0.13ab 0.62±0.15b
肝脏指数
Liver rate/%
6 2.24±0.27 1.91±0.41 1.89±0.22 1.77±0.39 1.96±0.38 0.181 <0.001 0.341
8 2.24±0.27 2.07±0.42 1.91±0.28 2.00±0.29 1.85±0.30
10 2.24±0.27a 1.62±0.18b 1.88±0.14b 1.96±0.36ab 1.65±0.45b

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 胚蛋给养Leu对肉鸡孵化性能和器官指数的影响

2.2.1 孵化性能

表3可知,在6胚龄时进行4.0 mg/mL Leu胚蛋注射试验,不同胚龄蛋重以及出壳时孵化率、健雏率在各组之间均无显著差异(P>0.05)。PC组17胚龄的体重和卵黄囊重显著低于NC组(P<0.05),Leu组15、17和19胚龄的胸肌重和胸肌率显著高于PC组和NC组(P<0.05),PC组15胚龄的腿肌重以及17胚龄的腿肌重和腿肌率显著低于Leu组和NC组(P<0.05)。
表3 胚蛋给养Leu对肉鸡孵化性能的影响

Table 3 Effects of in ovo feeding of Leu on hatching performance of broilers

项目
Items
采样时间
Sampling time
组别Groups P
P-value
NC PC Leu
蛋重
Egg weight/g
15胚龄E15 54.48±5.41 56.31±4.55 52.20±3.00 0.202
17胚龄E17 54.51±2.78 53.34±5.30 53.11±2.00 0.717
19胚龄E19 53.42±1.56 53.94±2.37 53.21±4.43 0.891
孵化率
Hatchability/%
出壳Hatch 97.22±1.82 95.83±2.92 98.61±1.39 0.662
健雏率
Rate of healthy chicks/%
出壳Hatch 95.83±2.92 94.45±2.10 97.22±1.82 0.705
体重
Body weight/g
15胚龄E15 27.29±3.08 24.97±2.60 26.14±2.58 0.267
17胚龄E17 39.77±1.89a 32.10±3.14b 37.20±2.62ab <0.001
19胚龄E19 40.54±2.70 39.69±1.71 42.37±3.44 0.157
出壳Hatch 42.01±2.62 43.31±2.12 43.89±2.24 0.625
卵黄囊重
Yolk sac weight/g
15胚龄E15 11.86±2.08 12.82±2.40 12.42±1.84 0.666
17胚龄E17 16.53±1.97a 13.49±1.50b 14.67±1.90ab 0.010
19胚龄E19 9.88±2.02 11.13±1.67 9.03±1.97 0.106
胸肌重
Breast muscle weight/g
15胚龄E15 0.19±0.02b 0.17±0.02b 0.24±0.02a <0.001
17胚龄E17 0.28±0.03b 0.26±0.03b 0.32±0.03a <0.001
19胚龄E19 0.34±0.06b 0.35±0.03b 0.44±0.08a 0.003
出壳Hatch 0.41±0.05 0.44±0.04 0.49±0.05 0.064
胸肌率
Breast muscle rate/%
15胚龄E15 0.70±0.10b 0.70±0.13b 0.91±0.13a 0.009
17胚龄E17 0.70±0.06c 0.80±0.06b 0.87±0.08a <0.001
19胚龄E19 0.83±0.13b 0.89±0.10b 1.04±0.14a 0.008
出壳Hatch 0.98±0.09 1.02±0.09 1.12±0.12 0.102
腿肌重
Thigh muscle weight/g
15胚龄E15 0.65±0.05a 0.58±0.07b 0.64±0.06a 0.003
17胚龄E17 1.28±0.10a 0.90±0.17b 1.27±0.18a <0.001
19胚龄E19 2.17±0.58 2.07±0.32 2.53±0.23 0.070
出壳Hatch 3.34±0.32 3.28±0.15 3.31±0.27 0.566
腿肌率
Thigh muscle rate/%
15胚龄E15 2.41±0.38 2.34±0.39 2.44±0.13 0.761
17胚龄E17 3.22±0.26a 2.79±0.35b 3.34±0.38a <0.001
19胚龄E19 5.32±0.46 5.21±0.67 5.98±0.41 0.175
出壳Hatch 7.98±0.88 7.58±0.50 7.55±0.54 0.393

2.2.2 肝脏、骨骼和肠道指数

表4可知,不同胚龄蛋重以及出壳时肝脏指数、股骨指数和胫骨指数在各组之间无显著差异(P>0.05)。PC组17胚龄的肝脏重显著低于NC组和Leu组(P<0.05),Leu组出壳时的股骨重和胫骨重显著高于NC组和PC组(P<0.05),PC组19胚龄的胫骨重显著低于NC组和Leu组(P<0.05)。
表4 胚蛋给养Leu对肉鸡肝脏和骨骼指数的影响

Table 4 Effects of in ovo feeding of Leu on liver and bone indices of broilers

项目
Items
采样时间
Sampling time
组别Groups P
P-value
NC PC Leu
肝脏重
Liver weight/g
15胚龄E15 0.24±0.03 0.21±0.04 0.22±0.03 0.156
17胚龄E17 0.48±0.04a 0.38±0.06b 0.46±0.04a <0.001
19胚龄E19 0.58±0.05 0.61±0.05 0.61±0.06 0.755
出壳Hatch 0.81±0.08 0.83±0.06 0.84±0.11 0.748
肝脏指数
Liver index/%
15胚龄E15 0.88±0.10 0.83±0.14 0.84±0.08 0.516
17胚龄E17 1.20±0.10 1.17±0.12 1.25±0.15 0.504
19胚龄E19 1.37±0.21 1.52±0.11 1.43±0.08 0.125
出壳Hatch 1.94±0.17 1.93±0.10 1.92±0.27 0.859
股骨重
Femur weight/g
15胚龄E15 0.03±0.01 0.02±0.01 0.03±0.01 0.573
17胚龄E17 0.10±0.04 0.08±0.03 0.10±0.02 0.179
19胚龄E19 0.18±0.06 0.18±0.03 0.22±0.03 0.077
出壳Hatch 0.29±0.04b 0.30±0.03b 0.33±0.04a 0.015
股骨指数
Femur index/%
15胚龄E15 0.09±0.03 0.09±0.04 0.11±0.06 0.664
17胚龄E17 0.25±0.10 0.24±0.09 0.28±0.06 0.562
19胚龄E19 0.49±0.10 0.44±0.09 0.53±0.07 0.190
出壳Hatch 0.69±0.07 0.69±0.08 0.76±0.09 0.154
胫骨重
Tibia weight/g
15胚龄E15 0.12±0.04 0.09±0.03 0.09±0.04 0.201
17胚龄E17 0.17±0.03 0.13±0.04 0.17±0.05 0.129
19胚龄E19 0.32±0.05a 0.26±0.06b 0.31±0.04a 0.037
出壳Hatch 0.35±0.02b 0.33±0.03b 0.40±0.06a 0.015
胫骨指数
Tibia index/%
15胚龄E15 0.36±0.18 0.35±0.08 0.36±0.15 0.397
17胚龄E17 0.43±0.07 0.41±0.10 0.45±0.10 0.839
19胚龄E19 0.78±0.10 0.66±0.15 0.75±0.11 0.182
出壳Hatch 0.84±0.08 0.77±0.10 0.92±0.14 0.051
表5可知,出壳时的十二指肠重、十二指肠指数和回肠指数在各组之间无显著差异(P>0.05)。Leu组出壳时的空肠重和空肠指数显著高于NC组和PC组(P<0.05),Leu组出壳时的回肠重显著高于NC组(P<0.05)。
表5 胚蛋给养Leu对肉鸡出壳时肠道指数的影响

Table 5 Effects of in ovo feeding of Leu on intestinal indices of broilers at hatch

项目
Items
组别Groups P
P-value
NC PC Leu
十二指肠重Duodenum weight/g 0.26±0.07 0.24±0.03 0.27±0.06 0.820
空肠重Jejunum weight/g 0.20±0.02b 0.23±0.03b 0.27±0.04a 0.001
回肠重Ileum weight/g 0.19±0.06b 0.22±0.01ab 0.24±0.04a 0.047
十二指肠指数Duodenum index/% 0.63±0.18 0.56±0.08 0.61±0.14 0.783
空肠指数Jejunum index/% 0.47±0.07b 0.53±0.08b 0.63±0.11a 0.008
回肠指数Ileum index/% 0.46±0.15 0.51±0.04 0.55±0.10 0.258

2.3 胚蛋给养Leu对肉鸡胸大肌肌纤维指标的影响

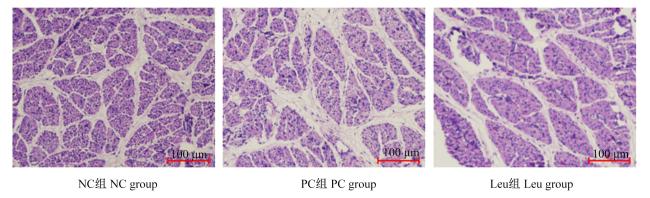
图1表6所示,Leu组19胚龄的胸大肌肌纤维横截面面积和肌纤维直径显著高于NC组和PC组(P<0.05)。
图1 胚蛋给养Leu对肉鸡胸大肌肌纤维形态的影响

Fig.1 Effects of in ovo feeding of Leu on myofiber morphology of pectoralis major muscle of broilers

表6 胚蛋给养Leu对肉鸡胸大肌肌纤维指标的影响

Table 6 Effects of in ovo feeding of Leu on myofiber indices of pectoralis major muscle of broilers

项目
Items
组别Groups P
P-value
NC PC Leu
肌纤维横截面面积
Cross-sectional area of myofiber/μm2
23.37±0.88b 23.83±1.38b 30.26±0.88a <0.001
肌纤维直径Diameter of myofiber/μm 5.41±0.10b 5.44±0.15b 6.17±0.09a 0.006

2.4 胚蛋给养Leu对肉鸡胸大肌肌肉生成相关基因表达的影响

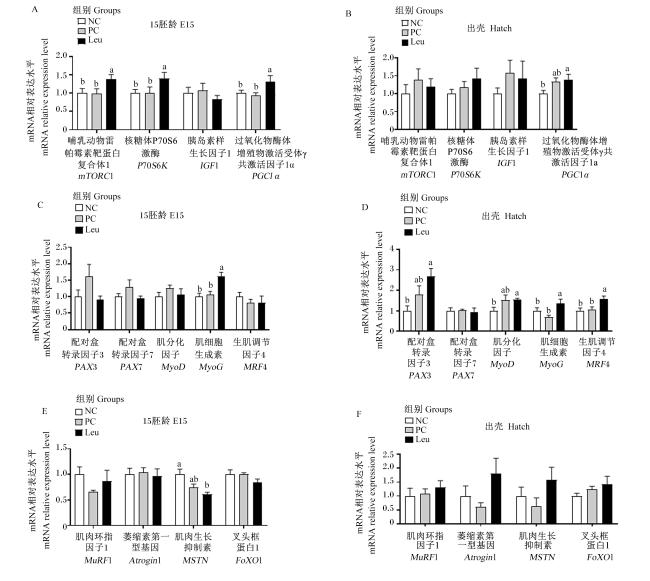
蛋白质合成相关基因表达结果显示,Leu组15胚龄的胸大肌mTORC1、P70S6KPGC1α的mRNA相对表达水平显著高于NC组和PC组(图2-A,P<0.05),出壳时胸大肌PGC1α的mRNA相对表达水平显著高于NC组(图2-B,P<0.05)。生肌调控因子相关基因表达结果显示,Leu组15胚龄的胸大肌MyoG的mRNA相对表达水平显著高于NC组和PC组(图2-C,P<0.05);出壳时胸大肌MyoGMRF4的mRNA相对表达水平显著高于NC组和PC组(P<0.05),出壳时胸大肌PAX3和MyoD的mRNA相对表达水平显著高于NC组(图2-D,P<0.05)。蛋白质降解相关基因表达结果显示,Leu组15胚龄的胸大肌MSTN的mRNA相对表达水平显著低于NC组(图2-E,P<0.05);出壳时胸大肌MuRF1、Atrogin1、MSTNFoXO1的mRNA相对表达水平在各组之间均无显著差异(图2-F,P>0.05)。
图2 胚蛋给养Leu对肉鸡胸大肌肌肉生成相关基因表达的影响

数据柱标相同小写字母或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of in ovo feeding of Leu on expression of myogenesis related genes in pectoralis major muscle of broilers

Value columns with the same small letter or no letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.5 胚蛋给养Leu对肉鸡胚胎期胸大肌代谢组学的影响

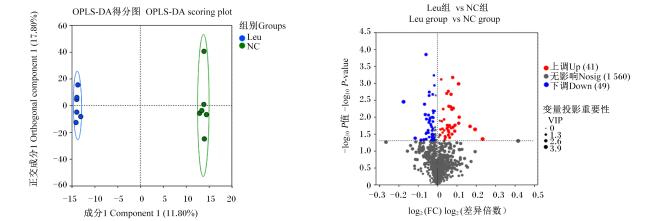
胚胎期胸大肌代谢组学分析结果显示,Leu组和NC组间构建的模型具有良好的稳定性和预测能力,可有效区分Leu组和NC组胸大肌代谢物组成(图3-A)。以VIP>1且P<0.05为标准,在Leu组和NC组肉鸡胸大肌中共筛选出90个差异代谢物,与NC组相比,Leu组胸大肌中41种差异代谢物显著上调,49种差异代谢产物显著下调(图3-B)。
图3 肉鸡胸大肌OPLS-DA得分图和代谢组火山图

Fig.3 OPLS-DA scoring plot and metabolomic volcanic map of pectoralis major muscle of broilers

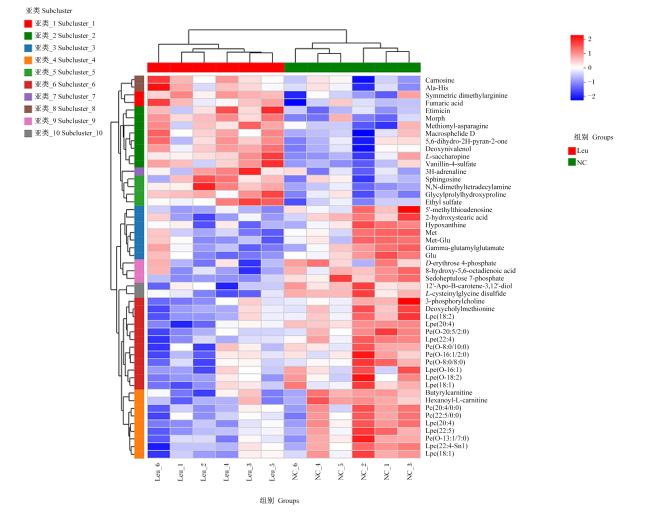
通过数据归一化差异代谢物进行聚类热图分析发现,Leu组和NC组间代谢物差异较为明显,同一分支下的样本有相近代谢物表达模式(图4)。肉鸡胸大肌氨基酸及其衍生物差异代谢物结果显示,与NC组相比,Leu组胸大肌中苏氨酸(Thr)-Leu-酪氨酸(Tyr)、磷酸肌酸(PCr)、组氨酸(His)、甲硫氨酰基-天冬酰胺的相对丰度显著上调(P<0.05),S-腺苷甲硫氨酸(SAM)、脱氧胆酰蛋氨酸、精氨酸(Arg)-天冬氨酸(Asp)、谷氨酸(Glu)、蛋氨酸(Met)的相对丰度显著下调(P<0.05)(表7)。
图4 NC组和Leu组肉鸡胸大肌差异代谢物层次聚类热图

Carnosine:肌肽;Ala-His:丙氨酸-组氨酸;Symmetric dimethylarginine:对称性二甲基精氨酸;Fumaric acid:富马酸;Etimicin:爱大霉素;Morph:吗啡;Methionyl-asparagine:甲硫氨酸基-天冬酰胺;Macrosphelide D:巨三内酯D;5,6-dihydro-2H-pyran-2-one:5,6-二氢-2H-吡喃-2-酮;Deoxynivalenol:红梭霉毒素;L-saccharopine:L-酵母氨酸;Vanillin-4-sulfate:香草醛-4-硫酸盐;3H-adrenaline:3H-肾上腺素;sphingosine:鞘氨醇;N,N-dimethyltetradecylamine:N,N-二甲基十四胺;Glycylprolylhydroxyproline:甘氨酰脯氨酸羟基脯氨酸;Ethyl sulfate:硫酸乙酯;5'-methylthioadenosine:甲硫腺苷;2-hydroxystearic acid:2-羟基硬脂酸;Hypoxanthine:次黄嘌呤;Met:蛋氨酸;Met-Glu:蛋氨酸-谷氨酸;Gamma-glutamylglutamate:γ-谷氨酰谷氨酸;Glu:谷氨酸;D-erythrose 4-phosphate:D-赤藓糖4-磷酸;8-hydroxy-5,6-octadienoic acid:8-羟基-5,6辛二烯酸;Sedoheptulose 7-phosphate:景天庚酮糖7-磷酸;12'-Apo-B-carotene-3,12'-diol:12'-Apo-β-胡萝卜素-3,12'-二醇;L-cysteinylglycine disulfide:L-半胱氨酰甘氨酸二硫化物;3-phosphorylcholine:磷酸胆碱;Deoxycholylmethionine:脱氧胆酰甲硫氨酸;Lpc(18∶2):溶血磷脂酰胆碱(18∶2);Lpe(20∶4):溶血磷脂酰乙醇胺(20∶4);Pe(O-20∶5/2∶0):磷脂酰乙醇胺(O-20∶5/2∶0);Lpe(22∶4):溶血磷脂酰乙醇胺(22∶4);Pc(O-8∶0/10∶0):磷脂酰胆碱(O-8∶0/10∶0);Pe(O-16∶1/2∶0):磷脂酰乙醇胺(O-16∶1/2∶0);Pc(O-8∶0/8∶0):磷脂酰胆碱(O-8∶0/8∶0);Lpe(O-16∶1):溶血磷脂酰乙醇胺(O-16∶1);Lpe(O-18∶2):溶血磷脂酰乙醇胺(O-18∶2);Lpe(18∶1):溶血磷脂酰乙醇胺(18∶1);Butyrylcarnitine:丁酰肉碱;Hexanoyl-L-carnitine:己酰肉碱;Pc(20∶4/0∶0):磷脂酰胆碱(20∶4/0∶0);Pc(22∶5/0∶0):磷脂酰胆碱(22∶5/0∶0);Lpc(20∶4):溶血磷脂酰胆碱(20∶4);Lpe(22∶5):溶血磷脂酰乙醇胺(22∶5);Pe(O-13∶1/7∶0):磷脂酰乙醇胺(O-13∶1/7∶0);Lpc(22∶4-Sn1):溶血磷脂酰胆碱(22∶4-Sn1);Lpc(18∶1):溶血磷脂酰胆碱(18∶1)。

Fig.4 Heat map of hierarchical clustering of differential metabolites of pectoralis major muscle of broilers between Leu group and NC group

表7 Leu组和NC组肉鸡胸大肌氨基酸及其衍生物差异代谢物相对丰度变化

Table 7 Changes in relative abundances of differential metabolites of amino acids and their derivatives in pectoralis major muscle of broilers between Leu group and NC group

序号
Serial
numbers
代谢物
Metabolite
代谢物ID
Metabolite ID
变量重要
性投影
VIP
P
P-value
差异倍数
FC
变化
Change
1 苏氨酸-亮氨酸-酪氨酸
Threonine-leucine-tyrosine
metab_4564 3.487 0.023 1.144 上调
2 磷酸肌酸Phosphocreatine metab_424 2.061 0.018 1.044 上调
3 组氨酸Histidine metab_11269 1.642 0.037 1.028 上调
4 甲硫氨酰基-天冬酰胺
Methionyl-asparagine
metab_7377 1.997 0.025 1.039 上调
5 S-腺苷甲硫氨酸S-adenosylmethionine metab_518 3.506 0.004 0.886 下调
6 脱氧胆酰蛋氨酸Deoxycholylmethionine metab_8553 1.798 0.014 0.970 下调
7 精氨酸-天冬氨酸Arginine-aspartate metab_8363 1.347 0.048 0.979 下调
8 谷氨酸Glutamate metab_7028 1.287 0.011 0.985 下调
9 蛋氨酸Methionine metab_1028 1.573 0.017 0.977 下调
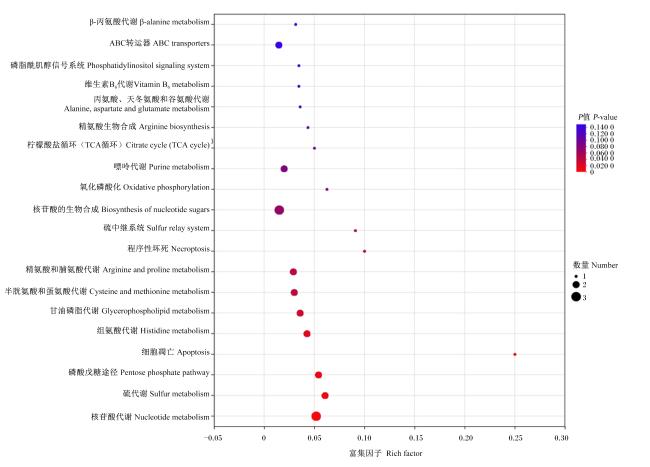
KEGG通路显示,其中前10的通路主要有核苷酸代谢、硫代谢、磷酸戊糖途径、细胞凋亡、His代谢、甘油磷脂代谢、半胱氨酸(Cys)和Met代谢、Arg和脯氨酸(Pro)代谢、程序性坏死和硫中继系统等(图5)。
图5 NC组和Leu组肉鸡胸大肌KEGG通路图

Fig.5 KEGG pathway map of pectoralis major muscle of broilers between Leu group and NC group

3 讨论

3.1 胚蛋给养Leu适宜注射条件的确定

肉鸡骨骼肌约占体重的40%,是机体最主要的器官之一。骨骼肌由具有多核的肌纤维所构成,骨骼肌生长取决于肌纤维数目的增多和体积的增大[7]。在孵化后期,鸡胚肠道和肝脏快速发育以及破壳过程都需要消耗大量的能量[8]。然而胚蛋中的能量储备有限,鸡胚将动员胸肌蛋白质降解为氨基酸,从而为糖异生提供底物,提高能量供给,此过程将诱发胸肌肌肉萎缩、鸡胚发育迟缓和雏鸡孵化率降低等问题[9-10]。当前,胚蛋注射技术已成为通过提供外源营养素促进家禽胚胎发育,进而提高出壳后生长性能的有效手段。有研究发现,18胚龄时羊膜腔注射葡萄糖、蔗糖和麦芽糖混合液能够显著提高肉鸡出壳体重,增加肝糖原含量[11]。分别在8、14和18胚龄肉鸡胚蛋中注射0.1、1.0和2.5 mg/mL的Arg发现,14胚龄时注射0.1 mg/mL的Arg能够显著提高肉鸡出壳体重,上调生肌调控因子MyoD和MyoG的蛋白表达,促进骨骼肌发育,然而在其他条件下注射Arg未有显著影响[12]。由此可见,胚蛋注射的效果受到注射液种类、剂量、部位以及时间等多种因素的影响。
胚蛋注射的部位主要有羊膜腔、卵黄囊、尿囊和气室等[13]。然而羊膜腔、卵黄囊和尿囊注射的操作要求较高,容易出现机械损伤[1]。气室注射外源营养物质可通过渗透作用被胚胎所吸收,最大限度地降低注射液对胚胎所造成的应激。此外,气室注射的操作较为简单,机械损伤较小,更有利于胚胎生长发育[14-15]。然而,1~4胚龄气室过小,注射体积有限,操作难度较大。随着胚胎的发育,15胚龄以后注射到气室会因渗透作用的减弱而降低效果,因此气室注射最佳的时间一般在孵化第5~14胚龄[1]。为进一步探究孵化早期胚蛋给养Leu对肉鸡骨骼肌肌肉生成的影响,本研究参照Han等[6]的方法,在鸡胚发育早期(6、8和10胚龄)经气室注射不同剂量的Leu(1.0、2.0和4.0 mg/mL的Leu溶液各200 μL,即200、400和800 μg的Leu),通过测定出壳时雏鸡体重、胸肌重和腿肌重,以确定Leu的适宜注射条件。结果显示,6胚龄时注射4.0 mg/mL的Leu提高了胸肌重和胸肌率,且对孵化率、健雏率和出壳体重均无显著影响。此外,不同胚龄和Leu处理对肉鸡出壳体重和胸肌率均未表现出明显的剂量依赖性,该结果与Subramaniyan等[12]的研究一致,其原因可能和不同胚龄鸡胚的生理差异以及Leu的最低有效作用剂量有关。综合各项指标,本研究确定胚蛋给养最适注射条件为6胚龄注射200 μL 4.0 mg/mL的Leu。

3.2 胚蛋给养Leu对肉鸡孵化性能和器官指数的影响

肉鸡骨骼肌约占体重的40%,是机体最主要的器官之一,骨骼肌的生长决定肉鸡的胴体性能和产肉量,进而影响生产效益。氨基酸不仅作为蛋白质合成的原料,也是调控机体蛋白质代谢的重要信号分子[16]。研究发现,饲粮中添加支链氨基酸(BCAA)可显著增加血清BCAA含量,调控骨骼肌代谢过程[17],其中Leu对骨骼肌蛋白质合成的促进效应最为显著[18]。在22胚龄火鸡胚蛋中羊膜腔注射BCAA混合液(Leu∶Val∶Ile=3∶1∶2)显著增加了24胚龄和出壳时的胸肌率和腿肌率[19]。然而在肉鸡饲粮中添加过量的Leu显著降低了21和35日龄肉鸡的胸肌率,且对腿肌率无明显影响[20]。β-羟基-β-甲基丁酸酯(HMB)作为Leu的代谢产物,其在调控骨骼肌蛋白质代谢方面也起到重要作用[21]。有研究发现,7胚龄时气室注射0.1%的HMB显著提高了肉鸡出壳时体重、5日龄胸肌率以及生长前21日龄的平均日增重,增加了7日龄肉鸡骨骼肌肌纤维直径和卫星细胞有丝分裂活性[22]。本研究结果显示,6胚龄时气室注射4.0 mg/mL的Leu增加了15~19胚龄的胸肌重和胸肌率,提高了19胚龄胸大肌肌纤维横截面面积和肌纤维直径。由此可见,孵化早期胚蛋给养适量的Leu促进了肉鸡胸肌发育,有利于提高生长性能。
在肉鸡生产中,人们过分注重肉鸡的生长速度,而骨骼发育问题易受到忽视。有研究表明,生长速度、遗传因素以及营养缺乏等均可导致肉鸡腿部疾病的发生,从而影响生长和福利水平,严重损害肉鸡养殖效益[23-24]。氨基酸作为一些生物活性分子如神经递质、第二信使以及细胞因子的前体物质,因此氨基酸代谢紊乱将诱发机体产生各种疾病,其中包括骨骼发育问题[25-26]。有研究发现,过量的Leu处理可通过诱导DNA损伤和细胞衰老而抑制成骨细胞增殖[27]。然而Leu与肉鸡骨骼发育相关研究较少,本研究发现,胚蛋给养Leu增加了出壳时雏鸡的股骨重、胫骨重以及胫骨指数。近年来研究表明,mTORC1信号通路在成骨细胞和软骨细胞生成过程中起到关键作用[28]。骨间充质细胞mTORC1缺失的小鼠出生后表现出明显的长骨、颅骨和胸骨缺陷,伴随着骨小梁骨量减少,其表现类似于人类的颅骨发育不全症[29-30]。作为mTORC1信号通路的有效激活剂,Leu可能通过mTORC1信号通路调控肉鸡胚胎期骨骼发育过程,相关机制研究仍需深入探究。
肠道作为机体营养物质消化吸收的主要场所,肠道发育决定了畜禽对营养物质的利用效率,进而影响生长性能。有研究发现,饲粮中添加0.4%的Leu显著增加20日龄肉鸡的肠道指数和长度,提高生长全期的日增重和饲料转化效率,改变了肠道免疫相关基因含核苷酸结合寡聚化域蛋白1(NOD1)、Toll样受体4(TLR4)和白细胞介素-4(IL-4)的mRNA相对表达水平[31]。然而,用高Leu含量的玉米干酒糟替代30%的豆粕显著降低了肉鸡空肠的绒毛高度、绒腺比和紧密连接蛋白相关基因的表达,阻碍了肉鸡生长[32]。在10胚龄日本鹌鹑胚蛋中羊膜腔注射2.5 mg的Leu显著提高了出壳后的体重和肠道长度,表明Leu促进了肠道生长发育,有利于提高生长性能[33]。本研究发现,胚蛋给养Leu比其他各组显著提高了出壳时雏鸡的空肠重和空肠指数。有研究表明,17胚龄时羊膜腔注射1%的Leu增加了19胚龄小肠上皮多功能干细胞和出壳后1、7日龄的增殖细胞核抗原(PCNA)增殖细胞数量[34]。由此可见,Leu在家禽生产中的应用效果受到添加剂量的影响,胚蛋给养适量的Leu对肉鸡的肠道发育具有积极作用。

3.3 胚蛋给养Leu对肉鸡胸大肌肌肉生成相关基因表达的影响

骨骼肌是机体最大的蛋白质库,蛋白质也是肌肉组织主要的成分之一。蛋白质代谢影响肌细胞的增殖和肌纤维体积的增大,进而调控骨骼肌的生长发育。mTORC1信号通路主要受雷帕霉素的调控,机体营养状态和生长因子均可激活mTORC1信号通路,进而通过上调P70S6K和4E结合蛋白1(4EBP1)的表达而促进核糖体的发生和蛋白质的合成[35-36]。有研究发现,肉鸡饲粮中添加0.3%和0.6%的Leu均可显著增加3、7和14日龄胸大肌mTORC1、P70S6K和4EBP1的mRNA相对表达水平,上调磷酸化mTORC1和核糖体S6蛋白激酶1(S6K1)的蛋白相对表达水平,表明Leu激活了肉鸡骨骼肌mTORC1信号通路[37]。胚蛋给养Leu通过激活日本鹌鹑mTORC1信号通路而促进出壳后体增重。本研究结果显示,孵化早期胚蛋给养Leu上调了15胚龄胸大肌mTORC1和P70S6K的mRNA相对表达水平,增加了15胚龄至出壳时的胸肌重和胸肌率。有研究表明,7胚龄时胚蛋给养34.5 μmol的Leu促进了14胚龄胸肌mTORC1、S6K1和4EBP1的表达,改变了血清氨基酸代谢水平[6]。13~15胚龄是肉鸡骨骼肌发育的关键时期,肉鸡孵化早期胸肌mTORC1和P70S6K的mRNA相对表达水平显著高于孵化后期[3,6]。因此,孵化早期胚蛋给养适量的Leu促进了骨骼肌蛋白质合成过程,有利于骨骼肌增重。
mTORC1信号通路不仅调控蛋白质合成,在细胞增殖分化和血管生成方面也起到重要作用[38]。研究发现,Leu缺乏抑制C2C12细胞的mTORC1信号通路,通过降低生肌调控因子相关基因的表达而影响细胞分化[39]。在大鼠卫星细胞上,Leu通过激活mTORC1信号通路而促进细胞的增殖分化,该作用随着mTORC1信号通路的抑制而被消除[40]。此外,单独添加Leu对大鼠骨骼肌生长和卫星细胞活力未有显著影响,然而Leu添加结合抗阻训练将显著增加肌纤维横截面面积(CSA)、卫星细胞数量以及MyoD、MyoG的蛋白相对表达水平[41]。在肉鸡上,mTORC1信号通路通过诱导骨骼肌MyoDMyoG的基因表达而调控肌肉生成[42]。与传统肉鸡品种相比,抑制快速生长型肉鸡胸肌的mTORC1信号通路对骨骼肌细胞增殖分化的不利影响会更为明显[43]。由此可知,mTORC1信号通路是调控肉鸡骨骼肌肌肉生成的关键靶点。本研究发现,胚蛋给养Leu上调了肉鸡胚胎期骨骼肌PAX3、MyoDMyoGMRF4的mRNA相对表达水平,因此Leu可通过mTORC1信号通路调控生肌调控因子相关基因的表达,进而促进骨骼肌细胞的增殖分化进程。
蛋白质分解代谢在维持机体稳态和调控代谢方面起到重要作用,其中机体最主要的蛋白质降解途径为泛素蛋白酶体依赖性(UP)途径[44-45]。UP通路关键酶E3泛素连接酶MuRF1和Atrogin1在蛋白质降解过程中主要参与识别底物,通过特异性地结合靶蛋白序列而调控蛋白质的降解[46]。在废用性肌萎缩大鼠模型中,补充Leu显著降低MuRF1和Atrogin1的mRNA相对表达水平,缓解了肌肉萎缩;然而在地塞米松诱导的肌肉萎缩模型中,Leu降低了Atrogin1的mRNA相对表达水平,但对肌纤维CSA的减少无明显缓解作用[47]。在肉鸡上的研究发现,饲粮中添加超出标准推荐量35%和60%的Leu均未影响生长性能、胴体重及胸肌和腿肌重量,对胸肌MuRF1、Atrogin1和FoXO1等的mRNA相对表达水平也无显著影响[48]。本研究结果与上述结果相似,即孵化早期胚蛋给养Leu未影响15胚龄和出壳时的胸大肌MuRF1、Atrogin1和FoXO1等表达,但降低了15胚龄胸大肌MSTN的表达。MSTN是骨骼肌生长发育的负调节因子[49],通过CRISAPR/Cas9技术降低3和14日龄肉鸡骨骼肌MSTN的表达可促进肌细胞增殖和肌肉生长[50]。由此可见,胚蛋给养Leu对UP通路相关基因表达无显著影响,但其通过降低MSTN的表达可能对蛋白质降解过程起到一定的抑制作用。

3.4 胚蛋给养Leu对肉鸡孵化期胸大肌代谢组学的影响

代谢组学是系统生物学领域的重要组成部分,本研究从代谢组学的角度探究胚蛋给养Leu对肉鸡骨骼肌生长发育的影响,为阐明Leu调控肉鸡胚胎期肌肉发育的机制以及提高出壳后生长性能提供重要数据支撑。氨基酸不仅是蛋白质合成的原料,其作为信号分子参与调控基因表达、蛋白质磷酸化级联反应以及生成各种代谢物等[51]。本研究结果显示,胚蛋给养Leu主要改变了肉鸡胸大肌氨基酸代谢通路,如His、Cys、Met、Arg和Pro代谢等,影响了核苷酸代谢、磷酸戊糖途径、细胞凋亡和程序性坏死等相关通路,结果提示,胚蛋给养Leu影响了蛋白质代谢和骨骼肌细胞数量,有利于提高骨骼肌增重。
在所有种类的氨基酸中,Leu对骨骼肌蛋白质代谢的作用最明显[52]。Thr是肉鸡玉米-豆粕型饲粮中的第三限制性氨基酸,其对调控免疫球蛋白的生成、维持肠道完整性和促进杯状细胞黏蛋白的分泌均起到重要作用[53-55]。本研究发现,胚蛋给养Leu增加了19胚龄肉鸡胸大肌Leu和Thr的相对丰度,有利于骨骼肌的增重,促进了胚胎期生长发育。然而,肉鸡骨骼肌细胞摄取Leu的方式及其所涉及的信号传导通路,仍有待进一步探究。肌酸(Cr)在骨骼肌中的含量非常丰富,Cr在肌酸激酶(CK)的作用下和ATP结合生成PCr和二磷酸腺苷(ADP),PCr作为能量储备物质,在维持骨骼肌能量稳态方面起到重要调控作用[56-58]。在鸡原代成肌细胞正常营养状态下,PCr通过激活mTORC1信号通路促进蛋白质合成;在营养缺乏或皮质酮导致的细胞肌肉萎缩模型中,PCr作为能量物质通过抑制UP通路相关基因表达而缓解蛋白质降解[59-60]。本研究结果发现,胚蛋给养Leu增加了肉鸡胸大肌PCr的相对丰度,其与上调mTORC1信号通路相关基因表达和增加胸肌增重等结果相一致。
Arg是家禽体内的必需氨基酸,其不仅是蛋白质合成的重要底物,也是生成信号分子一氧化氮(NO)的前体物质[61]。在动物体内,Arg被代谢为胍基丁胺、Cr和鸟氨酸(Orn),Orn进一步代谢生成谷氨酸(Glu)、脯氨酸和多胺[62]。Arg及其衍生物可显著提高畜禽生长性能,促进营养物质转运载体基因表达,减少超氧化物的生成释放,增强机体抗氧化性能[63-64]。本研究发现,胚蛋给养Leu减少了肉鸡胸大肌Arg和Glu的相对丰度,增加了His的相对丰度。Arg和His均为碱性氨基酸,在动物体内具有相同的转运吸收系统[65],因此Arg和His之间可能存在转运载体竞争机制。相似的研究发现,卵黄囊注射34.5 μmol/L的Leu显著降低了热应激肉鸡大脑和肝脏中Arg含量,结果表明胚蛋给养Leu改变了肉鸡体内的氨基酸代谢[66]。有研究表明,饲粮中添加高剂量的Arg会造成机体氧化应激,促进脂质超氧化物的生成,降低家禽生长性能[64,67]。因此,胚蛋给养Leu降低肉鸡胸大肌Arg含量可能对胚胎发育存在有益作用。

4 结论

6胚龄时胚蛋给养Leu(4.0 mg/mL的Leu溶液200 μL)可以提高肉鸡胚胎期胸肌、肠道和骨骼增重,促进胸肌蛋白质合成和细胞增殖分化相关基因表达,改变骨骼肌氨基酸和核苷酸代谢过程,有利于骨骼肌发育。
[1]
齐广海, 张海军, 马友彪, 等. 肉仔鸡胚期给养研究进展[J]. 饲料工业, 2019, 40(15):1-8.

QI G H, ZHANG H J, MA Y B, et al. In ovo feeding studies in broiler chicks[J]. Feed Industry, 2019, 40(15):1-8. (in Chinese)

[2]
PEEBLES E D. In ovo applications in poultry:a review[J]. Poultry Science, 2018, 97(7):2322-2338.

DOI

[3]
GU S, WEN C L, LI J Y, et al. Temporal expression of myogenic regulatory genes in different chicken breeds during embryonic development[J]. International Journal of Molecular Sciences, 2022, 23(17):10115.

DOI

[4]
ZHU C H, GI G, TAO Z Y, et al. Development of skeletal muscle and expression of myogenic regulatory factors during embryonic development in Jinding ducks (Anas platyrhynchos domestica)[J]. Poultry Science, 2014, 93(5):1211-1216.

DOI

[5]
HAN G F, CUI Y Y, SHEN D, et al. In ovo feeding of L-leucine improves antioxidative capacity and spleen weight and changes amino acid concentrations in broilers after chronic thermal stress[J]. Frontiers in Veterinary Science, 2022, 9:862572.

[6]
HAN G, YANG H, WANG Y, et al. Effects of in ovo feeding of L-leucine on amino acids metabolism and heat-shock protein-70,and -90 mRNA expression in heat-exposed chicks[J]. Poultry Science, 2019, 98(3):1243-1253.

DOI

[7]
DUMONT N A, WANG Y X, RUDNICKI M A. Intrinsic and extrinsic mechanisms regulating satellite cell function[J]. Development, 2015, 142(9):1572-1581.

DOI PMID

[8]
UNI Z, YADGARY L, YAIR R. Nutritional limitations during poultry embryonic development[J]. Journal of Applied Poultry Research, 2012, 21(1):175-184.

DOI

[9]
KEIRS R W, PEEBLES E D, GERARD P D. Relationship of late embryo loss and anomalies in broiler offspring1[J]. Journal of Applied Poultry Research, 2007, 16(1):62-69.

DOI

[10]
MORAN E T Jr. Nutrition of the developing embryo and hatchling[J]. Poultry Science, 2007, 86(5):1043-1049.

PMID

[11]
ZHAI W, GERARD P D, PULIKANTI R, et al. Effects of in ovo injection of carbohydrates on embryonic metabolism,hatchability,and subsequent somatic characteristics of broiler hatchlings[J]. Poultry Science, 2011, 90(10):2134-2143.

DOI

[12]
SUBRAMANIYAN S A, KANG D R, PARK J R, et al. Effect of in ovo injection of L-arginine in different chicken embryonic development stages on post-hatchability,immune response,and Myo-D and myogenin proteins[J]. Animals, 2019, 9(6):357.

DOI

[13]
DAS R, MISHRA P, JHA R. In ovo feeding as a tool for improving performance and gut health of poultry:a review[J]. Frontiers in Veterinary Science, 2021, 8:754246.

[14]
BERROCOSO J D, KIDA R, SINGH A K, et al. Effect of in ovo injection of raffinose on growth performance and gut health parameters of broiler chicken[J]. Poultry Science, 2017, 96(6):1573-1580.

DOI

[15]
RETES P L, CLEMENTE A H S, NEVES D G, et al. In ovo feeding of carbohydrates for broilers-a systematic review[J]. Journal of Animal Physiology and Animal Nutrition, 2018, 102(2):361-369.

DOI

[16]
MITCHELL W K, WILKINSON D J, PHILLIPS B E, et al. Human skeletal muscle protein metabolism responses to amino acid nutrition[J]. Advances in Nutrition, 2016, 7(4):828S-838S.

[17]
MATTICK J S A, KAMISOGLU K, IERAPETRITOU M G, et al. Branched-chain amino acid supplementation:impact on signaling and relevance to critical illness[J]. Wiley Interdisciplinary Reviews.Systems Biology and Medicine, 2013, 5(4):449-460.

[18]
KIM W K, SINGH A K, WANG J Q, et al. Functional role of branched chain amino acids in poultry:a review[J]. Poultry Science, 2022, 101(5):101715.

DOI

[19]
KOP-BOZBAY C, OCAK N. In ovo injection of branched-chain amino acids:embryonic development,hatchability and hatching quality of turkey poults[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(4):1135-1142.

DOI

[20]
ZEITZ J O, KÄDING S C, NIEWALDA I R, et al. The influence of dietary leucine above recommendations and fixed ratios to isoleucine and valine on muscle protein synthesis and degradation pathways in broilers[J]. Poultry Science, 2019, 98(12):6772-6786.

DOI PMID

[21]
HOLEČEK M. Beta-hydroxy-beta-methylbutyrate supplementation and skeletal muscle in healthy and muscle-wasting conditions[J]. Journal of Cachexia,Sarcopenia and Muscle, 2017, 8(4):529-541.

DOI

[22]
MA Y B, ZHANG F D, WANG J, et al. Effect of in ovo feeding of β-hydroxy-β-methylbutyrate on hatchability,muscle growth and performance in prenatal and posthatch broilers[J]. Journal of the Science of Food and Agriculture, 2020, 100(2):755-763.

DOI

[23]
SGAVIOLI S, SANTOS E T, BORGES L L, et al. Effect of the addition of glycosaminoglycans on bone and cartilaginous development of broiler chickens[J]. Poultry Science, 2017, 96(11):4017-4025.

DOI PMID

[24]
BRADSHAW R H, KIRKDEN R D, BROOM D M, et al. A review of the aetiology and pathology of leg weakness in broilers in relation to welfare[J]. Avian and Poultry Biology Reviews, 2002, 13(2):45-103.

DOI

[25]
DING K H, CAIN M, DAVIS M, et al. Amino acids as signaling molecules modulating bone turnover[J]. Bone, 2018, 115:15-24.

DOI

[26]
SUZUKI A, IWATA J. Amino acid metabolism and autophagy in skeletal development and homeostasis[J]. Bone, 2021, 146:115881.

[27]
DA LUZ DIAS R, BASSO B, DONADIO M V F, et al. Leucine reduces the proliferation of MC3T3-E1 cells through DNA damage and cell senescence[J]. Toxicology in Vitro, 2018, 48:1-10.

DOI PMID

[28]
CHEN J A, LONG F X. mTOR signaling in skeletal development and disease[J]. Bone Research, 2018, 6:1.

[29]
CHEN J A, LONG F X. mTORC1 signaling controls mammalian skeletal growth through stimulation of protein synthesis[J]. Development, 2014, 141(14):2848-2854.

DOI PMID

[30]
DAI Q G, XU Z, MA X H, et al. mTOR/raptor signaling is critical for skeletogenesis in mice through the regulation of Runx2 expression[J]. Cell Death and Differentiation, 2017, 24(11):1886-1899.

DOI

[31]
PAN X, HE J, HAMADA O, et al. Effects of dietary leucine supplementation on intestinal development and gene expression of pattern recognition receptors (PRRs) in broilers[J]. Poultry Science, 2025, 104(8):105266.

DOI

[32]
GOO D, LEE J, PANERU D, et al. Effects of branched-chain amino acid imbalance and dietary valine and isoleucine supplementation in modified corn-soybean meal diets with corn distillers dried grains with solubles on growth performance, carcass quality,intestinal health,and cecal microbiome in Cobb 500[J]. Poultry Science, 2024, 103(12):104483.

DOI

[33]
NDUNGURU S F, REDA G K, CSERNUS B, et al. Embryonic leucine promotes early postnatal growth via mTOR signalling in Japanese quails[J]. Animals, 2024, 14(17):2596.

DOI

[34]
REICHER N, MELKMAN-ZEHAVI T, DAYAN J, et al. Nutritional stimulation by in ovo feeding modulates cellular proliferation and differentiation in the small intestinal epithelium of chicks[J]. Animal Nutrition, 2022, 8(1):91-101.

DOI

[35]
AVRUCH J, HARA K, LIN Y, et al. Insulin and amino-acid regulation of mTOR signaling and kinase activity through the Rheb GTPase[J]. Oncogene, 2006, 25(48):6361-6372.

DOI PMID

[36]
ZHANG P P, LIANG X R, SHAN T Z, et al. mTOR is necessary for proper satellite cell activity and skeletal muscle regeneration[J]. Biochemical and Biophysical Research Communications, 2015, 463(1/2):102-108.

DOI

[37]
DENG H L, ZHENG A J, LIU G H, et al. Activation of mammalian target of rapamycin signaling in skeletal muscle of neonatal chicks:effects of dietary leucine and age[J]. Poultry Science, 2014, 93(1):114-121.

DOI

[38]
LAPLANTE M, SABATINI D M. mTOR signaling in growth control and disease[J]. Cell, 2012, 149(2):274-293.

DOI PMID

[39]
AVEROUS J, GABILLARD J C, SEILIEZ I, et al. Leucine limitation regulates myf5 and myoD expression and inhibits myoblast differentiation[J]. Experimental Cell Research, 2012, 318(3):217-227.

DOI

[40]
DAI J M, YU M X, SHEN Z Y, et al. Leucine promotes proliferation and differentiation of primary preterm rat satellite cells in part through mTORC1 signaling pathway[J]. Nutrients, 2015, 7(5):3387-3400.

DOI

[41]
LIM C H, GIL J H, QUAN H L, et al. Effect of 8-week leucine supplementation and resistance exercise training on muscle hypertrophy and satellite cell activation in rats[J]. Physiological Reports, 2018, 6(12):e13725.

DOI

[42]
XU J H, STRASBURG G M, REED K M, et al. Thermal stress and selection for growth affect myogenic satellite cell lipid accumulation and adipogenic gene expression through mechanistic target of rapamycin pathway[J]. Journal of Animal Science, 2022, 100(8):skac001.

[43]
XU J H, VELLEMAN S G. Effects of thermal stress and mechanistic target of rapamycin and wingless-type mouse mammary tumor virus integration site family pathways on the proliferation and differentiation of satellite cells derived from the breast muscle of different chicken lines[J]. Poultry Science, 2023, 102(5):102608.

DOI

[44]
PASIAKOS S M, CARBONE J W. Assessment of skeletal muscle proteolysis and the regulatory response to nutrition and exercise[J]. IUBMB Life, 2014, 66(7):478-484.

DOI PMID

[45]
BODINE S C, STITT T N, GONZALEZ M, et al. Akt/mTOR pathway is a crucial regulator of skeletal muscle hypertrophy and can prevent muscle atrophy in vivo[J]. Nature Cell Biology, 2001, 3(11):1014-1019.

DOI

[46]
KANG S H, LEE H A, KIM M, et al. Forkhead box O3 plays a role in skeletal muscle atrophy through expression of E3 ubiquitin ligases MuRF-1 and atrogin-1 in Cushing’s syndrome[J]. American Journal of Physiology:Endocrinology and Metabolism, 2017, 312(6):E495-E507.

[47]
BAPTISTA I L, SILVA W J, ARTIOLI G G, et al. Leucine and HMB differentially modulate proteasome system in skeletal muscle under different sarcopenic conditions[J]. PLoS One, 2013, 8(10):e76752.

DOI

[48]
ZEITZ J O, KÄDING S C, NIEWALDA I R, et al. Effects of leucine supplementation on muscle protein synthesis and degradation pathways in broilers at constant dietary concentrations of isoleucine and valine[J]. Archives of Animal Nutrition, 2019, 73(2):75-87.

DOI PMID

[49]
LANGLEY B, THOMAS M, BISHOP A, et al. Myostatin inhibits myoblast differentiation by down-regulating MyoD expression[J]. The Journal of Biological Chemistry, 2002, 277(51):49831-49840.

DOI

[50]
XU K, HAN C X, ZHOU H, et al. Effective MSTN gene knockout by AdV-delivered CRISPR/Cas9 in postnatal chick leg muscle[J]. International Journal of Molecular Sciences, 2020, 21(7):2584.

DOI

[51]
WU G Y. Amino acids:metabolism,functions,and nutrition[J]. Amino Acids, 2009, 37(1):1-17.

[52]
XIAO F, GUO F F. Impacts of essential amino acids on energy balance[J]. Molecular Metabolism, 2022, 57:101393.

[53]
CHEN Y P, CHENG Y F, LI X H, et al. Effects of threonine supplementation on the growth performance,immunity,oxidative status,intestinal integrity,and barrier function of broilers at the early age[J]. Poultry Science, 2017, 96(2):405-413.

DOI

[54]
MIN Y N, LIU S G, QU Z X, et al. Effects of dietary threonine levels on growth performance,serum biochemical indexes,antioxidant capacities,and gut morphology in broiler chickens[J]. Poultry Science, 2017, 96(5):1290-1297.

DOI

[55]
BASSAREH M, REZAEIPOUR V, ABDULLAHPOUR R, et al. Dietary threonine and lysophospholipid supplement in broiler chickens:effect on productive performance,carcass variables,cecal microbiota activity,and jejunal morphology[J]. Tropical Animal Health and Production, 2023, 55(3):150.

DOI

[56]
WALLIMANN T, TOKARSKA-SCHLATTNER M, SCHLATTNER U. The creatine kinase system and pleiotropic effects of creatine[J]. Amino Acids, 2011, 40(5):1271-1296.

DOI PMID

[57]
SESTILI P, BARBIERI E, STOCCHI V. Effects of creatine in skeletal muscle cells and in myoblasts differentiating under normal or oxidatively stressing conditions[J]. Mini-Reviews in Medicinal Chemistry, 2016, 16(1):4-11.

DOI

[58]
TOSSENBERGER J, RADEMACHER M, NÉMETH K, et al. Digestibility and metabolism of dietary guanidino acetic acid fed to broilers[J]. Poultry Science, 2016, 95(9):2058-2067.

DOI PMID

[59]
SUN M F, JIAO H C, WANG X J, et al. The regulating pathway of creatine on muscular protein metabolism depends on the energy state[J]. American Journal of Physiology:Cell Physiology, 2022, 322(5):C1022-C1035.

[60]
SUN M F, JIAO H C, ZHAO J P, et al. Research Note:creatine monohydrate alleviates protein breakdown induced by corticosterone via inhibiting ubiquitin proteasome pathway in chicken myotubes[J]. Poultry Science, 2022, 101(12):102177.

DOI

[61]
WU G Y, BAZER F W, DAVIS T A, et al. Arginine metabolism and nutrition in growth,health and disease[J]. Amino Acids, 2009, 37(1):153-168.

DOI

[62]
MORRIS S M Jr. Enzymes of arginine metabolism[J]. The Journal of Nutrition, 2004, 134(S10):2743S-2747S;discussion 2765S-2767S.

[63]
PETROVIC V, BUZADZIC B, KORAC A, et al. Antioxidative defence alterations in skeletal muscle during prolonged acclimation to cold:role of L-arginine/NO-producing pathway[J]. The Journal of Experimental Biology, 2008, 211(Pt.1):114-120.

DOI

[64]
SUN M F, MA N, LIU H, et al. The optimal dietary arginine level of laying hens fed with low-protein diets[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):63.

DOI PMID

[65]
MORALES A, BUENABAD L, CASTILLO G, et al. Low-protein amino acid-supplemented diets for growing pigs:effect on expression of amino acid transporters,serum concentration,performance,and carcass composition[J]. Journal of Animal Science, 2015, 93(5):2154-2164.

DOI

[66]
HAN G F, REN Y, SHEN D, et al. L-leucine in ovo administration causes growth retardation and modifies specific amino acid metabolism in broiler embryos[J]. The Journal of Poultry Science, 2021, 58(3):163-170.

DOI

[67]
DE CARVALHO A M, DE OLIVEIRA A A F, DE MELO LOUREIRO A P, et al. Arginine intake is associated with oxidative stress in a general population[J]. Nutrition, 2017, 33:211-215.

DOI PMID

Outlines

/