RESEARCH PAPER

Effects of All-Trans Retinoic Acid on Intestinal and Hepatic Health of Broilers Stimulated by Lipopolysaccharide

  • XIONG Yushu ,
  • HE Lai ,
  • LI Changwu ,
  • LI Peng ,
  • DING Binying ,
  • GUO Shuangshuang , *
Expand
  • Hubei Key Laboratory of Animal Nutrition and Feed Science, Wuhan Polytechnic University, Wuhan 430023, China
* associate professor, E-mail:

Received date: 2025-07-08

  Online published: 2026-01-13

Abstract

This experiment was conducted to investigate the effects of all-trans retinoic acid (ATRA) on intestinal and hepatic health of broilers stimulated by lipopolysaccharide (LPS). A total of 144 one-day-old healthy Arbor Acres Plus (AA+) broilers with similar initial body weight were randomly divided into 2 groups, fed with basal diet supplemented with 0 and 0.5 mg/kg ATRA, respectively. Each group had 6 replicates with 12 broilers per replicate (half male and half female). On 36 days of age, 4 broilers with body weight close to the average weight of each replicate (48 broilers in total) were selected. LPS stimulation was performed on 36, 38, 40 and 42 days of age: 2 broilers (1 male and 1 female) in each replicate were intraperitoneally injected with 1 mg/kg BW LPS, and the other 2 broilers (1 male and 1 female) were intraperitoneally injected with the same volume of sterile normal saline. According to the presence or absence of ATRA supplementation and LPS stimulation, the broilers were divided into 4 groups: CON group (basal diet+sterile normal saline), ATRA group (ATRA-supplemented diet+sterile normal saline), LPS group (basal diet+LPS stimulation) and ATRA+LPS group (ATRA-supplemented diet+LPS stimulation). All broilers were slaughtered for sample collection 3 hours after the last LPS stimulation on 42 days of age. The results showed as follows: 1) dietary ATRA supplementation had no significant effects on the growth performance of broilers from 1 to 21 days, 22 to 35 days and 1 to 35 days of age (P>0.05). 2) The spleen index of the LPS group was significantly higher than that of the CON group (P<0.05), and the spleen index of the ATRA+LPS group was significantly lower than that of the LPS group (P<0.05). 3) Dietary ATRA supplementation significantly decreased the duodenal villus height (VH) and crypt depth (CD) (P<0.05). The jejunal CD of the LPS group was significantly lower than that of the CON group (P<0.05), and the jejunal CD of the ATRA+LPS group was significantly higher than that of the LPS group (P<0.05). 4) The mRNA relative expression level of jejunal Mucin2 in the ATRA group was significantly higher than that in the other 3 groups (P<0.05). 5) LPS stimulation significantly increased the mRNA relative expression levels of interleukin-8 (IL-8), tumor necrosis factor-α (TNF-α) and interleukin-1β (IL-1β) in liver (P<0.05), and significantly decreased the mRNA relative expression level of interferon-γ (IFN-γ) in liver (P<0.05). Dietary ATRA supplementation significantly increased the mRNA relative expression levels of nuclear factor-κB (NF-κB), transforming growth factor-β4 (TGF-β4), B-cell lymphoma-2 associated X protein (BAX), B-cell lymphoma-2 (BCL-2), matrix metalloproteinase 9 (MMP9), heat shock protein 70 (HSP70), retinoic acid receptor α (RARα), retinoic acid receptor β (RARβ), retinoic acid receptor γ (RARγ), retinoid X receptor α (RXRα) and retinoid X receptor γ (RXRγ) in liver (P<0.05). The mRNA relative expression level of liver retinol dehydrogenase 10 (RDH10) in the LPS group was significantly higher than that in the other 3 groups (P<0.05), and the mRNA relative expression level of liver retinaldehyde dehydrogenase 2 (RALDH2) in the ATRA group was significantly higher than that in the other 3 groups (P<0.05). Compared with the CON group and LPS group, the mRNA relative expression level of liver RARγ in the ATRA group and ATRA+LPS group was significantly increased (P<0.05). In conclusion, dietary supplementation with 0.5 mg/kg ATRA can alleviate LPS-induced inflammatory responses in liver and spleen of broilers, and improve intestinal mucosal immunity by promoting jejunal Mucin2 expression, but it has no obvious alleviating effect on intestinal barrier and mucus layer damage caused by LPS stimulation. Meanwhile, ATRA can regulate retinoic acid metabolism, and these effects are speculated to be achieved by regulating the RAR/RXR signaling pathway.

Cite this article

XIONG Yushu , HE Lai , LI Changwu , LI Peng , DING Binying , GUO Shuangshuang . Effects of All-Trans Retinoic Acid on Intestinal and Hepatic Health of Broilers Stimulated by Lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 346 -359 . DOI: 10.12418/CJAN2026.027

免疫应激与肠道健康问题是制约肉鸡养殖业可持续发展的关键因素。革兰氏阴性菌(如大肠杆菌和沙门氏菌)的细胞壁成分脂多糖(LPS)会引发机体免疫应激,进而破坏肠道结构与屏障功能,导致肉鸡出现消化障碍与生长迟缓,最终造成经济效益下降[1]
维生素A(VA)是维持动物正常生理功能所必需的脂溶性微量营养素。研究表明,饲粮中添加VA有助于调节动物免疫功能并改善肠道健康[2-3]。作为VA的关键生物活性衍生物,全反式视黄酸(ATRA)是其生理功能的核心执行者与调控因子[4]。ATRA不仅参与胚胎发育、视觉形成及细胞增殖与分化等过程,还在免疫调节和肠道稳态维持中发挥重要作用[5-6]。ATRA可通过调控归巢受体CC族趋化因子受体9(CCR9)和整合素α4β7的表达,激活固有免疫系统效应细胞(包括固有淋巴细胞群和T淋巴细胞亚群)的定向迁移能力,单独应用时可缓解动物肠道损伤并增强机体免疫功能[7]。此外,ATRA还能通过调节白细胞数量及抑制信号传导和转录激活蛋白3(STAT3)介导的骨髓来源的抑制性细胞(MDSCs)存活,逆转LPS刺激诱导的小鼠免疫抑制状态[8]
研究表明,ATRA对大鼠生长发育的影响呈现剂量依赖性:高剂量(20 mg/kg)会抑制其生长性能,导致体重显著下降;而适宜剂量(5 mg/kg)则未见显著负面效应[9-10]。这提示在家禽生产中合理添加ATRA可能具有缓解免疫应激和改善肠道屏障功能的潜力。基于前人对肉鸡饲粮中ATRA添加量(0、0.5、2.0 mg/kg)的初步研究[11],本研究采用LPS刺激建立免疫应激模型,旨在探究0.5 mg/kg ATRA能否有效缓解肉鸡免疫应激与肝脏损伤,以期为ATRA在肉鸡养殖生产中的科学应用提供理论依据与技术支撑。

1 材料与方法

1.1 试验材料

ATRA(货号:R2625,纯度≥98%,生物来源:合成有机物)和LPS(货号:L2630,采用苯酚提取法纯化,来源于大肠杆菌血清型O111:B4)均购自Sigma-Aldrich公司。爱拔益加(AA+)肉鸡购自湖北襄阳正大家禽公司。

1.2 试验设计与饲养管理

动物试验方案经武汉轻工大学动物伦理和使用委员会批准(批准号:WPU202303004)。选取144只初始体重相近的1日龄健康AA+肉鸡,随机分为2组,分别饲喂在基础饲粮中添加0和0.5 mg/kg ATRA的饲粮,每组6个重复,每个重复12只鸡(公母各占1/2)。于36日龄时,从每个重复中选取4只体重接近该重复平均体重的鸡(共48只),在36、38、40及42日龄进行LPS刺激处理:每重复中2只鸡(1公1母)腹腔注射1 mg/kg BW的LPS,另2只鸡(1公1母)腹腔注射等体积无菌生理盐水。根据ATRA添加与否及LPS刺激与否,将上述鸡只分为CON组(基础饲粮+无菌生理盐水)、ATRA组(添加ATRA+无菌生理盐水)、LPS组(基础饲粮+LPS刺激)和ATRA+LPS组(添加ATRA+LPS刺激)。于42日龄LPS刺激处理3 h后进行屠宰取样。
试验开始前对鸡舍环境及饲养器具进行消毒。试验期间采用笼养方式,鸡只自由采食与饮水,1~7日龄采用24 h光照,7日龄后调整为20 h光照与4 h黑暗,相对湿度控制在40%~72%,初始温度设置为33 ℃,随后每周下调约3 ℃,最终稳定在22 ℃并维持至试验结束。基础饲粮参照《鸡饲养标准》(NY/T 33—2004)[12]配制,其组成及营养水平见表1。饲粮中粗蛋白质、钙和总磷含量分别参照GB/T 6432—2018[13]、GB/T 6436—2018[14]和GB/T 6437—2018[15]的方法进行测定,代谢能、有效磷和氨基酸含量参照《中国饲料成分及营养价值表(2021年第32版)》计算得出。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
含量Content
1~21日龄
1 to 21
days of age
22~42日龄
22 to 42
days of age
原料Ingredients
玉米Corn 51.90 61.11
豆粕Soybean meal 39.80 31.15
大豆油Soybean oil 4.20 4.50
磷酸氢钙CaHPO4 1.80 1.30
石粉Limestone 1.16 0.83
食盐NaCl 0.20 0.20
L-赖氨酸盐酸盐L-Lys·HCl 0.23 0.23
DL-蛋氨酸DL-Met 0.19 0.17
L-苏氨酸L-Thr 0.13 0.12
氯化胆碱Choline chloride 0.15 0.15
矿物质预混料Mineral premix1) 0.20 0.20
维生素预混料Vitamin premix2) 0.04 0.04
合计Total 100.00 100.00
营养水平Nutrient levels3)
代谢能ME/(MJ/kg) 12.38 12.89
粗蛋白质CP 21.50 18.50
钙Ca 0.98 0.85
总磷TP 0.67 0.64
有效磷AP 0.46 0.37
赖氨酸Lys 1.19 1.01
蛋氨酸Met 0.48 0.43
色氨酸Trp 0.23 0.19
苏氨酸Thr 0.80 0.68

1)矿物质预混料为每千克饲粮提供 The mineral premix provided the following per kg of diets:Cu 10 mg,Zn 100 mg,Fe 80 mg,Mn 100 mg,Se 0.3 mg,I 0.7 mg。

2)维生素预混料为每千克饲粮提供 The vitamin premix provided the following per kg of diets:VA 6 000 IU,VD 3 000 IU,VK3 3.2 mg,VB1 3 mg,VB2 4.0 mg,VB12 0.025 mg,VE 44 IU,生物素 biotin 0.032 5 mg,叶酸 folic acid 2.00 mg,泛酸 pantothenic acid 15 mg,尼克酸 nicotinic acid 15 mg。

3)粗蛋白质、钙和总磷为实测值,其余为计算值。CP, Ca and TP were measured values, while the others were calculated values.

1.3 样品采集与处理

于42日龄LPS刺激处理3 h后,对肉鸡进行称重,随后经颈动脉放血处死鸡只,取肝脏、肾脏、脾脏、胸腺和法氏囊,用于计算器官指数;采集长度约1 cm的十二指肠、空肠及回肠中段组织样本,经4%多聚甲醛溶液固定后,用于后续形态学分析;另取10 cm空肠组织以及肝脏,经预冷无菌生理盐水清洗后于-80 ℃冰箱保存,用于测定基因表达水平。

1.4 指标检测

1.4.1 生长性能

于21和35日龄时(禁食8 h,自由饮水),分别以重复为单位对肉鸡进行称重,并精确统计剩料量,计算1~21日龄、22~35日龄及1~35日龄的平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。

1.4.2 器官指数

对肝脏、肾脏、脾脏、胸腺和法氏囊进行称重,根据以下公式计算器官指数:
器官指数(g/kg)=器官重(g)/宰前活重(kg)。

1.4.3 肠道形态观察和测量

取经4%多聚甲醛溶液固定的肠道组织样本,委托武汉博士德生物工程有限公司完成常规石蜡切片制备及苏木精-伊红(HE)染色处理。采用OLYMPSBX-41TF光学显微镜分析肠道组织形态特征,随机选取8根结构完整的肠绒毛,使用配套的CellSens Standard软件对其绒毛高度(VH)及对应隐窝深度(CD)分别进行测定,并计算绒隐比(VH/CD),最终以平均值反映肠道形态学特征。

1.4.4 肝脏及空肠相关基因表达水平

肝脏及空肠样本经液氮冷冻研磨后,采用TRIzol试剂(Invitrogen公司,美国)提取总RNA,并使用PrimeScriptTM RT反转录试剂盒合成cDNA。随后使用ChamQ SYBR预混试剂(南京诺唯赞生物科技股份有限公司)通过ABI7500实时荧光定量PCR系统(Thermo Fisher Scientific公司,美国)进行基因表达量的检测,扩增反应上机体系为5 μL SYBR、0.2 μL ROXⅡ、1 μL cDNA、3.4 μL无酶水、0.2 μL上游引物(10 μmol/L)和0.2 μL下游引物(10 μmol/L)。PCR反应条件:95 ℃预变性30 s;95 ℃变性5 s,60 ℃退火34 s,共40个循环;熔解曲线程序:95 ℃变性15 s,60 ℃退火1 min,95 ℃延伸15 s。PCR所用引物序列信息见表2。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt方法计算目的基因的mRNA相对表达量。目的基因包括空肠屏障基因[闭锁小带蛋白-1(ZO-1)、闭合蛋白(Occludin)、封闭蛋白-1(Claudin-1)、黏蛋白2(Mucin2)]、肝脏炎症基因[肿瘤坏死因子-α(TNF-α)、干扰素-γ(IFN-γ)、白细胞介素-8(IL-8)、白细胞介素-1β(IL-1β)、诱导型一氧化氮合酶(iNOS)、核因子-κB(NF-κB)、转化生长因子-β4(TGF-β4)]、肝脏损伤基因[B细胞淋巴瘤-2相关X蛋白(BAX)、B细胞淋巴瘤-2(BCL-2)、基质金属蛋白酶9(MMP9)、热休克蛋白70(HSP70)]、肝脏视黄酸代谢基因[细胞色素P450 26A1(CYP26A1)、视黄醛脱氢酶2(RALDH2)、视黄醇脱氢酶10(RDH10)]、肝脏视黄酸受体家族(RARs)基因[视黄酸受体α(RARα)、视黄酸受体β(RARβ)、视黄酸受体γ(RARγ)]、肝脏维甲酸X受体家族(RXRs)基因[维甲酸X受体α(RXRα)、维甲酸X受体γ(RXRγ)]。
表2 引物序列

Table 2 Primer sequences

基因
Genes
GenBank登录号
GenBank
accession No.
上游引物序列
Upstream primer sequences
(5'—3')
下游引物序列
Downstream primer sequences
(5'—3')
闭锁小带蛋白-1
ZO-1
XM_040706827.2 CTTCAGGGTGTTTCTCTTCCTCCTC CTGTGGTTTCATGGCTGGATC
闭合蛋白
Occludin
NM_205128.1 ACGGCAGCACCTACCTCAA GGGCGAAGAAGCAGATGAG
封闭蛋白-1
Claudin-1
NM_001013611.2 CATACTCCTGGGTCTGGTTGGT GACAGCCATCCGCATCTTCT
黏蛋白2
Mucin2
XM_040701656.2 TTCATGATGCCTGCTCTTGTG CCTGAGCCTTGGTACATTCTTGT
肿瘤坏死因子-α
TNF-α
NM_204267 GAGCGTTGACTTGGCTGTC AAGCAACAACCAGCTATGCAC
干扰素-γ
IFN-γ
NM_205149.1 AGCTGACGGTGGACCTATTATT GGCTTTGCGCTGGATTC
白细胞介素-8
IL-8
AJ009800 ATGAACGGCAAGCTTGGAGCTG ATGAACGGCAAGCTTGGAGCTG
白细胞介素-1β
IL-1β
NM_204524 ACTGGGCATCAAGGGCTA GGTAGAAGATGAAGCGGGTC
诱导型一氧化氮合酶
iNOS
U46505 CAGCTGATTGGGTGTGGAT TTTCTTTGGCCTACGGGTC
核因子-κB
NF-κB
NM_205129 GTGTGAAGAAACGGGAACTG GGCACGGTTGTCATAGATGG
转化生长因子-β4
TGF-β4
M31160 CGGGACGGATGAGAAGAAC CGGCCCACGTAGTAAATGAT
B细胞淋巴瘤-2相关X蛋白
BAX
XM422067 TCCTCATCGCCATGCTCAT CCTTGGTCTGGAAGCAGAAGA
B细胞淋巴瘤-2
BCL-2
NM_205339.2 CAACGGAGGATGGGATGC CAGGCTCAGGATGGTCTT
基质金属蛋白酶9
MMP9
NM_204667 ATGAACTACTCCCCCGACCTG AGTCCAGAACTCATCATCATCG
热休克蛋白70
HSP70
AY143693 TCTCATCAAGCGTAACACCAC TCTCACCTTCATACACCTGGAC
细胞色素P450 26A1
CYP26A1
NM001001129.1 TACCGACAAGGACGAGTTCA CATTGTAGGAGGTCCATTTAGC
视黄醛脱氢酶2
RALDH2
AF064253 CAAGACATGAACCCATCG GAGCTGGAGCAATCTTCC
视黄醇脱氢酶10
RDH10
NM001199459.1 AATGCTGGCGTGGTCTC TCATCGGCTGGTCTGTAAG
视黄酸受体α
RARα
NM_204536.1 AGGAGCTGATCGAGAAGG GAGCTGTTGTTCGTGGTG
视黄酸受体β
RARβ
NM_205326 GCATCAGTGCAAAAGGTG TGTCAGTGGTTCGTGTCC
视黄酸受体γ
RARγ
NM_205294 GATGAAGATCACCGACCTG TCCTCCTCGAACATCTCG
维甲酸X受体α
RXRα
XM_003642291.6 GATGCGAGACATGCAGATG GTCGGGGTATTTGTGCTTG
维甲酸X受体γ
RXRγ
NM_205294.2 CCAAGACGGAGGCATACAG GGAGCGATGGGAGAAGGAT
β-肌动蛋白
β-actin
NM_205518 GAGAAATTGTGCGTGACATCA CCTGAACCTCTCATTGCCA

1.5 数据统计与分析

使用SPSS 27.0软件进行统计分析,对生长性能数据进行独立样本t检验,结果以“平均值±标准差”表示;对其余指标进行双因素方差分析,模型主效应包括ATRA、LPS及二者的交互效应,当交互效应显著时,采用Duncan氏法进行组间多重比较。结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著,0.05≤P<0.10为具有差异显著的趋势。

2 结果

2.1 ATRA对肉鸡生长性能的影响

表3可知,与0 mg/kg ATRA组相比,0.5 mg/kg ATRA组肉鸡1~21日龄、22~35日龄及1~35日龄ADFI、ADG和F/G均无显著变化(P>0.05)。
表3 ATRA对肉鸡生长性能的影响

Table 3 Effects of ATRA on growth performance of broilers

项目
Items
全反式视黄酸添加水平ATRA supplemental levels/(mg/kg) P
P-value
0 0.5
1~21日龄1 to 21 days of age
平均日采食量ADFI/(g/d) 40.25±0.79 40.91±2.21 0.507
平均日增重ADG/(g/d) 27.75±1.25 28.74±1.49 0.242
料重比F/G 1.45±0.05 1.42±0.02 0.225
22~35日龄22 to 35 days of age
平均日采食量ADFI/(g/d) 136.96±8.56 132.81±4.83 0.325
平均日增重ADG/(g/d) 75.52±6.00 75.37±4.09 0.961
料重比F/G 1.82±0.09 1.77±0.10 0.363
1~35日龄1 to 35 days of age
平均日采食量ADFI/(g/d) 78.93±3.56 77.67±2.94 0.518
平均日增重ADG/(g/d) 46.86±2.72 47.39±2.41 0.726
料重比F/G 1.69±0.07 1.64±0.07 0.280

2.2 ATRA对LPS刺激肉鸡器官指数的影响

表4可知,LPS刺激显著提高了肝脏指数、肾脏指数和脾脏指数(P<0.05),且有显著降低胸腺指数的趋势(P=0.088);饲粮中添加ATRA与LPS刺激对脾脏指数存在显著的交互效应(P<0.05)。与CON组相比,LPS组脾脏指数显著提高(P<0.05);与LPS组相比,ATRA+LPS组脾脏指数显著降低(P<0.05)。
表4 ATRA对LPS刺激肉鸡器官指数的影响

Table 4 Effects of ATRA on organ indices of broilers stimulated by LPS g/kg

项目
Items
肝脏指数
Liver index
肾脏指数
Kidney index
脾脏指数
Spleen index
胸腺指数
Thymus index
法氏囊指数
Bursa of
Fabricius index
组别Groups
CON 18.49 2.70 1.19c 1.89 1.90
ATRA 20.19 2.86 1.32bc 2.05 1.77
LPS 23.36 3.09 2.14a 1.67 1.94
ATRA+LPS 21.04 3.11 1.63b 1.59 1.71
均值标准误SEM 0.648 0.075 0.097 0.092 0.092
PP-value
全反式视黄酸ATRA 0.799 0.558 0.193 0.845 0.348
脂多糖LPS 0.024 0.036 <0.001 0.088 0.963
全反式视黄酸×脂多糖ATRA×LPS 0.104 0.612 0.031 0.516 0.792

同列数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same column, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.3 ATRA对LPS刺激肉鸡肠道组织形态的影响

表5可知,LPS刺激显著提高了十二指肠VH、VH/CD及回肠CD(P<0.05),显著降低了回肠VH/CD(P<0.05);饲粮中添加ATRA能够显著降低十二指肠VH和CD(P<0.05);饲粮中添加ATRA与LPS刺激对十二指肠VH/CD和空肠CD存在显著的交互效应(P<0.05)。LPS组十二指肠VH/CD较CON组显著提高(P<0.05),空肠CD较CON组和ATRA+LPS组显著降低(P<0.05)。
表5 ATRA对LPS刺激肉鸡肠道组织形态的影响

Table 5 Effects of ATRA on intestinal tissue morphology of broilers stimulated by LPS

项目
Items
十二指肠Duodenum 空肠Jejunum 回肠Ileum
绒毛高度
VH/μm
隐窝深度
CD/μm
绒隐比
VH/CD
绒毛高度
VH/μm
隐窝深度
CD/μm
绒隐比
VH/CD
绒毛高度
VH/μm
隐窝深度
CD/μm
绒隐比
VH/CD
组别Groups
CON 1 307.44 287.68 4.90b 1 136.69 193.65a 5.91 623.18 144.77 4.35
ATRA 1 058.20 172.96 6.27ab 1 024.83 182.00ab 5.83 523.76 134.93 3.97
LPS 1 532.74 229.95 7.73a 902.55 156.29b 5.87 540.52 174.05 3.24
ATRA+LPS 1 373.78 219.62 6.49ab 1 061.76 188.89a 5.65 588.10 194.86 3.12
均值标准误SEM 52.800 15.350 0.350 43.466 5.245 0.240 26.791 8.450 0.180
PP-value
全反式视黄酸
ATRA
0.035 0.037 0.915 0.785 0.289 0.773 0.636 0.727 0.455
脂多糖LPS 0.006 0.848 0.023 0.259 0.127 0.830 0.867 0.007 0.005
全反式视黄酸×
脂多糖
ATRA×LPS
0.629 0.078 0.049 0.124 0.030 0.888 0.185 0.332 0.698

2.4 ATRA对LPS刺激肉鸡空肠屏障基因表达的影响

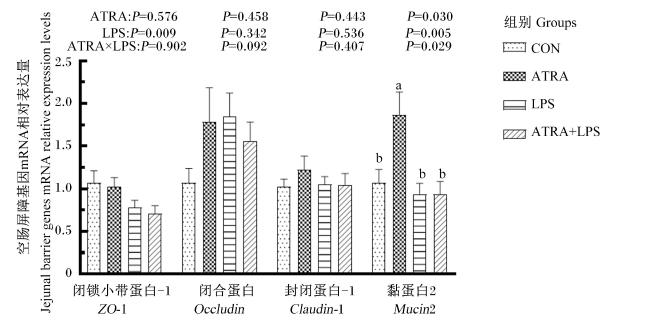
图1可知,LPS刺激显著降低了空肠ZO-1的mRNA相对表达量(P<0.05);饲粮中添加ATRA与LPS刺激对空肠Mucin2的mRNA相对表达量存在显著的交互效应(P<0.05)。与其他3组相比,ATRA组空肠Mucin2的mRNA相对表达量显著提高(P<0.05)。
图1 ATRA对LPS刺激肉鸡空肠屏障基因表达的影响

ATRA:全反式视黄酸;LPS:脂多糖;ATRA×LPS:全反式视黄酸×脂多糖。数据柱形标注不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of ATRA on expression of jejunal barrier genes of broilers stimulated by LPS

ATRA: all-trans retinoic acid; LPS: lipopolysaccharide; ATRA×LPS: all-trans retinoic acid×lipopolysaccharide. Value columns with different letters mean significant difference (P<0.05). The same as below.

2.5 ATRA对LPS刺激肉鸡肝脏炎症和损伤基因表达的影响

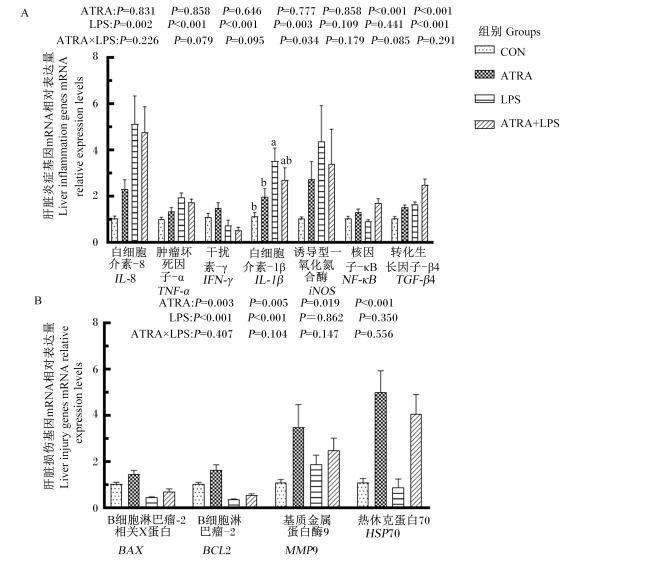
图2-A可知,LPS刺激显著提高了肝脏IL-8、TNF-αIL-1β的mRNA相对表达量(P<0.05),显著降低了肝脏IFN-γ的mRNA相对表达量(P<0.05);饲粮中添加ATRA能够显著提高肝脏NF-κBTGF-β4的mRNA相对表达量(P<0.05);饲粮中添加ATRA与LPS刺激对IL-1β的mRNA相对表达量存在显著的交互效应(P<0.05)。LPS组肝脏IL-1β的mRNA相对表达量较CON组和ATRA组显著提高(P<0.05)。
图2 ATRA对LPS刺激肉鸡肝脏炎症和损伤基因表达的影响

Fig.2 Effects of ATRA on expression of liver inflammation and injury genes of broilers stimulated by LPS

图2-B可知,LPS刺激显著降低了肝脏BAXBCL-2的mRNA相对表达量(P<0.05);饲粮中添加ATRA则能够显著提高肝脏BAXBCL-2、MMP9和HSP70的mRNA相对表达量(P<0.05)。

2.6 ATRA对LPS刺激肉鸡肝脏视黄酸代谢、RARs和RXRs基因表达的影响

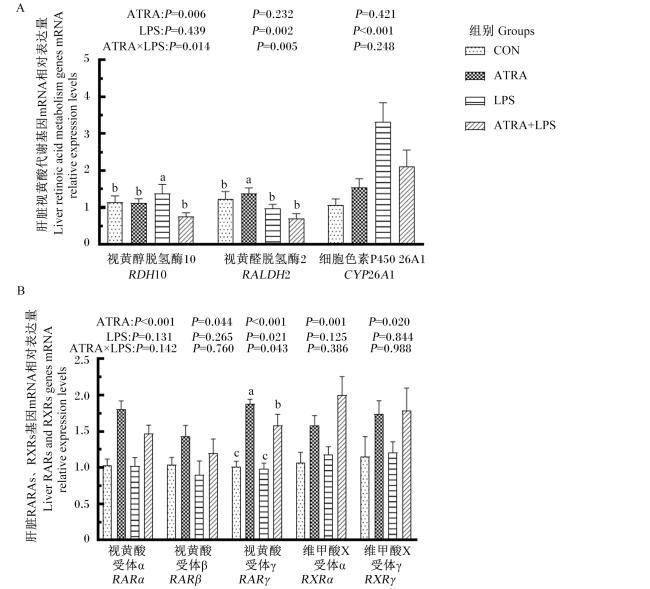
图3-A可知,LPS刺激显著提高了肝脏CYP26A1的mRNA相对表达量(P<0.05);饲粮中添加ATRA与LPS刺激对肝脏RDH10和RALDH2的mRNA相对表达量存在显著的交互效应(P<0.05)。LPS组肝脏RDH10的mRNA相对表达量显著高于其他3组(P<0.05),ATRA组肝脏RALDH2的mRNA相对表达量显著高于其他3组(P<0.05)。
图3 ATRA对LPS刺激肉鸡肝脏视黄酸代谢、RARs和RXRs基因表达的影响

Fig.3 Effects of ATRA on expression of liver retinoic acid metabolism as well as RARs and RXRs genes of broilers stimulated by LPS

图3-B可知,饲粮中添加ATRA能够显著提高肝脏RARαRARβRARγRXRαRXRγ的mRNA相对表达量(P<0.05);饲粮中添加ATRA与LPS刺激对肝脏RARγ的mRNA相对表达量存在显著的交互效应(P<0.05)。与CON组和LPS组相比,ATRA组和ATRA+LPS组肝脏RARγ的mRNA相对表达量显著提高(P<0.05)。

3 讨论

3.1 ATRA对肉鸡生长性能的影响

牟琪等[10]研究发现,高剂量(20 mg/kg)ATRA会抑制SD大鼠的生长性能,而适宜剂量(5 mg/kg)ATRA对其生长性能无显著影响。另有研究显示,在正常饲养条件下,饲粮中添加5和15 mg/d ATRA对仔猪生长性能无显著影响[16]。本研究中,在饲粮VA含量高于6 000 IU/kg时,向肉鸡饲粮中添加0.5 mg/kg ATRA未显著影响其生长性能,与前人研究结果相似。这可能是添加剂量较低、VA的调节作用以及肠道健康的维持等因素共同作用的结果。

3.2 ATRA对LPS刺激肉鸡器官指数的影响

器官指数可作为评估动物机体功能状态的重要参考指标[17]。郝晓洁等[18]研究表明,饲粮中添加750~48 000 IU/kg VA时,肉鸡脾脏指数和胸腺指数未出现明显变化。庞建建[3]的报道也证实,饲粮中添加VA对肉鸡和蛋鸡的脏器指数均未产生显著影响。本研究中,饲粮中添加0.5 mg/kg ATRA对肉鸡器官指数无显著影响,与上述研究结果一致。值得注意的是,本试验中LPS刺激显著提高了脾脏指数,推测这可能是由于LPS激发了脾脏强烈的免疫应答,导致淋巴细胞活化和增殖,进而引发了脾脏的病理性肿大[19-20]。而饲粮中添加ATRA可有效缓解LPS刺激导致的脾脏指数升高,表明ATRA对免疫应激状态下脾脏的异常反应具有一定保护作用。

3.3 ATRA对LPS刺激肉鸡肠道组织形态的影响

肠道形态学特征直接影响营养物质的消化吸收效率,通过组织切片分析获得的VH和CD等参数,是评估肠道吸收功能与健康状况的常用指标[21]。研究表明,饲粮中添加适量(2 500 IU/kg)VA可促进北京鸭十二指肠绒毛生长[22];类似地,饲粮中添加VA也能促进仔猪小肠形态发育,显著提高绒毛宽度(VW)和VH,同时显著降低CD[2]。本研究发现,饲粮中添加ATRA显著降低了肉鸡十二指肠VH和CD,提示其未对十二指肠组织形态表现出改善效果。LPS刺激后,十二指肠VH和VH/CD显著提高,空肠CD降低,而回肠则表现为CD提高及VH/CD降低,说明LPS刺激未对十二指肠和空肠组织形态造成明显损伤,对回肠组织形态可能造成了一定程度的损伤。

3.4 ATRA对LPS刺激肉鸡空肠屏障基因表达的影响

紧密连接结构主要由闭锁小带蛋白、Occludin、封闭蛋白、桥粒蛋白及连接黏附分子等核心成分构成[23],肠道细胞间的紧密连接为机体构筑了一个重要的保护屏障。本研究中,LPS刺激显著下调了空肠ZO-1的表达,提示其可能破坏了肠道紧密连接结构,导致肠道屏障通透性升高,进而可能促使内毒素进入血液循环并引发系统性炎症反应。
肠道化学屏障又称肠道黏液屏障,主要由黏蛋白、抗菌物质、胆汁酸、消化酶及溶菌酶等成分组成[24]。肠道黏液层不仅能影响肠道表面的吸附能力和微生物定植状态,还能保护肠道上皮细胞免受病原微生物的侵袭[24]。本研究中,饲粮中添加ATRA显著提高了空肠Mucin2的mRNA相对表达量,表明ATRA可能通过促进杯状细胞分泌黏液,增强肠道化学屏障功能。这可能是由于ATRA作为VA的衍生物,对上皮细胞分化与维持有积极作用[2-3]。但在LPS刺激下,ATRA对空肠Mucin2表达的上调作用被抵消,说明尽管ATRA在正常情况下可有效增强黏液屏障,但其保护效应无法缓解LPS刺激对肠道屏障和黏液层产生的损伤。

3.5 ATRA对LPS刺激肉鸡肝脏炎症和损伤基因表达的影响

有研究发现,LPS可通过与Toll样受体4(TLR4)结合被识别,进而触发NF-κB信号通路活化,诱导IL-1β、白细胞介素-6(IL-6)及TNF-α等促炎因子表达,调控炎症反应的发生与发展[25-26]。本研究中,LPS刺激显著上调了肉鸡肝脏IL-8、TNF-αIL-1β等促炎因子的表达,这与LPS诱导全身性炎症、引发肝损伤的机制相符;而肝脏IFN-γ表达显著下调,提示LPS可能通过抑制辅助性T细胞1(Th1)通路增加了机体继发感染的风险。ATRA通常被认为具有抗炎作用,但本研究发现其在非炎症状态下上调了炎症因子NF-κB的表达。相关研究显示,ATRA在某些条件下可以通过激活NF-κB信号通路,促进炎症因子的表达。例如,在鞭毛蛋白存在时,ATRA可能通过上调巨噬细胞表面CD14的表达,增强细菌鞭毛素刺激下的促炎反应,从而促进NF-κB的激活和促炎细胞因子(如TNF-αIL-1β)的表达[27]。这提示ATRA在特定条件下可能具有促炎作用,尤其是在巨噬细胞等免疫细胞中。本研究结果表明,LPS刺激可显著上调肝脏IL-1β的表达,而饲粮中添加ATRA后,LPS对IL-1β的诱导效应呈现被抑制的趋势,提示ATRA在炎症状态下可能对肝脏具有保护作用。研究表明,特定抗炎因子如白细胞介素-10(IL-10)和转化生长因子-β(TGF-β)可有效减轻肝脏组织损伤程度[28]。本研究中,饲粮中添加ATRA显著上调了肝脏TGF-β4的表达,这也表明了ATRA可能对肝脏损伤具有保护作用。
已有研究表明,野生型和突变型的MMP9均能有效缓解四氯化碳(CCl4)诱导的小鼠肝纤维化,其机制可能与MMP9的表达上调促进细胞外基质降解有关[29-30]。另有研究证实,ATRA可通过调节RARα的表达来促进MMP9与粒细胞-巨噬细胞集落刺激因子(GM-CSF)的产生,从而提高巨噬细胞的吞噬活性[31]。热休克蛋白(HSPs)作为关键分子伴侣,除介导细胞应激保护外,还可通过CD14/Toll样受体2/4(TLR2/4)通路激活单核-巨噬细胞系统,其作用机制与LPS类似。这一功能拓展揭示了HSPs在固有免疫及炎症调控中的双重作用[32]。本研究中,饲粮中添加ATRA显著上调了肉鸡肝脏MMP9和HSP70的表达,提示其通过促进组织修复和增强应激耐受协同维持肝脏稳态。
作为BCL-2家族的核心调控蛋白,BAX与BCL-2在细胞凋亡起始环节发挥关键作用[33]。BCL-2作为重要的抗凋亡调控因子,具有双重保护作用,一方面可减少活性氧生成,另一方面能维持线粒体膜电位稳定;与之相反,BAX则主要发挥促凋亡功能[34]。BAX与BCL-2通常呈现拮抗作用,但本研究中ATRA同时上调了肉鸡肝脏BAXBCL-2的表达,提示其可能通过调控网络平衡细胞命运,激活促凋亡与抗凋亡信号,维持细胞在应激状态下的存活灵活性。

3.6 ATRA对LPS刺激肉鸡肝脏视黄酸代谢、RARs和RXRs基因表达的影响

视黄醇脱氢酶1(RDH1)、RDH10和脱氢酶/还原酶家族9(DHRS9)在生理上参与了VA通过连续反应生成视黄酸的过程[35]。视黄醛脱氢酶(RALDH)具有细胞特异性,仅在肠上皮细胞、树突状细胞及肠系膜淋巴结中特异性表达,这种独特的表达模式定义并限制了视黄酸的作用范围[36-37]。此外,视黄酸通过含视黄酸反应元件(RARE)的靶基因细胞色素P450 26家族(CYP26)调控自身分解代谢[38]。本研究中,LPS刺激显著上调了肝脏CYP26A1的表达,从而促进了视黄酸的分解;同时,LPS刺激还下调了RALDH2的表达,抑制了视黄酸的合成。这些结果表明,在免疫应激条件下,机体可能通过上述双重途径降低ATRA的生物利用度。本研究还发现,饲粮中添加ATRA后,非应激状态下肝脏RALDH2的表达显著上调,促进了视黄酸的合成,但肝脏RDH10的表达下调,抑制了视黄醛的生成;而在LPS应激条件下,ATRA的添加进一步显著下调了肝脏RDH10的表达,提示在免疫应激状态下ATRA可能通过抑制视黄酸合成前体(视黄醛)生成,进一步影响视黄酸合成。饲粮中添加ATRA与LPS刺激对肝脏RDH10和RALDH2的表达存在显著的交互效应,提示应激与营养干预的复杂互作可能影响视黄酸代谢平衡。
视黄酸是核激素受体超家族成员视黄酸受体(RAR)的配体,RAR作为配体激活型转录因子发挥作用[39]。ATRA是RAR的高亲和力内源性配体,以细胞和组织特异性方式调控基因转录。RARs包含α、β、γ 3种亚型,RXRs同样包含α、β、γ 3种亚型[40],维甲酸X受体(RXR)与RAR形成的异质二聚体(如RAR/RXR)能以高亲和力结合DNA,其靶标DNA即为RARE[41]。本研究中,饲粮中添加ATRA显著上调了肝脏RARαRARβRARγRXRαRXRγ的表达,提示其可能通过正反馈调控增强视黄酸信号通路的敏感性,但仍需结合受体蛋白水平及下游靶基因活性进一步验证通路的实际激活状态。此外,饲粮中添加ATRA能够逆转LPS刺激对RARγ表达的抑制作用,维持甚至上调其表达量,表明ATRA可能通过靶向调控RARγ表达,拮抗LPS刺激诱导的视黄酸信号通路抑制。

4 结论

饲粮中添加0.5 mg/kg ATRA可缓解LPS刺激诱导的肉鸡肝脏与脾脏炎症反应,并能通过促进空肠Mucin2表达改善肠道黏膜免疫,但其对LPS刺激导致的肠道屏障及黏液层损伤无明显缓解作用;同时,ATRA可调控视黄酸代谢,这些作用可能是通过调控RAR/RXR信号通路实现的。
[1]
ZHANG L Z, GONG J G, LI J H, et al. Dietary resveratrol supplementation on growth performance,immune function and intestinal barrier function in broilers challenged with lipopolysaccharide[J]. Poultry Science, 2023, 102(10):102968.

DOI

[2]
贾玉川, 黄大鹏, 彭秋媛. 蛋氨酸锌和维生素A对断奶仔猪生长性能及小肠前段肠道功能的影响[J]. 动物营养学报, 2019, 31(1):124-130.

JIA Y C, HUANG D P, PENG Q Y. Effects of zinc methionine and vitamin on growth performance and intestinal function of small intestinal front section of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2019, 31(1):124-130. (in Chinese)

[3]
庞建建. 日粮维生素A水平对不同品种(系)鸡免疫应激的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2010.

PANG J J. Effects of dietary vitamin A on growth performance and immune responses to in meat and egg-type chickens[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2010. (in Chinese)

[4]
THEODOSIOU M, LAUDET V, SCHUBERT M. From carrot to clinic:an overview of the retinoic acid signaling pathway[J]. Cellular and Molecular Life Sciences, 2010, 67(9):1423-1445.

DOI

[5]
CASSANI B, VILLABLANCA E J, DE CALISTO J, et al. Vitamin A and immune regulation:role of retinoic acid in gut-associated dendritic cell education,immune protection and tolerance[J]. Molecular Aspects of Medicine, 2012, 33(1):63-76.

DOI

[6]
MORA J R, IWATA M, VON ANDRIAN U H. Vitamin effects on the immune system:vitamins A and D take center stage[J]. Nature Reviews Immunology, 2008, 8(9):685-698.

DOI

[7]
CUI D, MOLDOVEANU Z, STEPHENSEN C B. High-level dietary vitamin A enhances T-helper type 2 cytokine production and secretory immunoglobulin A response to influenza A virus infection in BALB/c mice[J]. The Journal of Nutrition, 2000, 130(5):1132-1139.

DOI

[8]
MARTIRE-GRECO D, LANDONI V I, CHIARELLA P, et al. All-trans-retinoic acid improves immunocompetence in a murine model of lipopolysaccharide-induced immunosuppression[J]. Clinical Science, 2014, 126(5):355-365.

DOI

[9]
王霞, 白昊笛, 沈琴, 等. 全反式维甲酸对生长发育期大鼠实质器官的损伤[J]. 解剖学报, 2020, 51(4):576-582.

DOI

WANG X, BAI H D, SHEN Q, et al. Effects of all-trans retinoic acid on parenchymal organ injury in developmental rats[J]. Acta Anatomica Sinica, 2020, 51(4):576-582. (in Chinese)

DOI

[10]
牟琪. 全反式视黄酸对SD大鼠生长性能、肠道功能以及肠上皮细胞增殖分化的影响[D]. 硕士学位论文. 长沙: 湖南师范大学, 2021.

MU Q. Effects of all-trans retinoic acid on growth performance,intestinal function, and proliferation and differentiation of intestinal epithelial cells in SD rats[D]. Master’s Thesis. Changsha: Hunan Normal University, 2021. (in Chinese)

[11]
郑丽云. 全反式视黄酸对坏死性肠炎肉鸡肠道健康的影响[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2023.

ZHENG L Y. Effects of all-trans retinoic acid on intestinal health of broilers challenged with necrotic enteritis[D]. Master’s Thesis. Wuhan: Wuhan Polytechnic University, 2023. (in Chinese)

[12]
中华人民共和国农业部. 鸡饲养标准:NY/T 33—2004[S]. 北京: 中国农业出版社, 2004.

Ministry of Agriculture of the People’s Republic of China. Feeding standard of chicken:NY/T 33—2004[S]. Beijing: China Agriculture Press, 2004. (in Chinese)

[13]
国家市场监督管理总局, 国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[14]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
国家市场监督管理总局, 国家标准化管理委员会. 饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of phosphorus in feeds-spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[16]
蒲俊宁. 全反式视黄酸缓解猪传染性胃肠炎病毒感染的作用及其机制研究[D]. 博士学位论文. 雅安: 四川农业大学, 2022.

PU J N. Effects and mechanisms of all-trans retinoic acid on alleviating porcine transmissible gastroenteritis virus infection[D]. Ph.D.Thesis. Ya’an: Sichuan Agricultural University, 2022. (in Chinese)

[17]
钱宁, 吴曙光, 郭科男, 等. 幼龄贵州小型猪主要脏器重量及脏器系数的测定[J]. 实验动物科学, 2007, 24(4):24-26.

QIAN N, WU S G, GUO K N, et al. Determination of the main organ weight and organ coefficient of young Guizhou miniature pigs[J]. Laboratory Animal Science, 2007, 24(4):24-26. (in Chinese)

[18]
郝晓洁, 刘国华, 张姝, 等. 日粮维生素A水平对肉仔鸡抗氧化指标和免疫器官指数的影响[J]. 甘肃农业大学学报, 2011, 46(5):27-32.

HAO X J, LIU G H, ZHANG S, et al. Effects of vitamin A levels in dietary on antioxidant and immune organ indexes of broilers[J]. Journal of Gansu Agricultural University, 2011, 46(5):27-32. (in Chinese)

[19]
钟友宝. 脂多糖诱导断奶仔猪应激模型脾脏组织结构与相关分子表达变化研究[D]. 硕士学位论文. 南昌: 江西农业大学, 2018.

ZHONG Y B. Study on the histology structure of spleen and the changes of related molecular expression in weaned piglet stress model induced by lipopolysaccharide[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2018. (in Chinese)

[20]
DING D J, MOU D L, ZHAO L P, et al. Maternal organic selenium supplementation alleviates LPS induced inflammation,autophagy and ER stress in the thymus and spleen of offspring piglets by improving the expression of selenoproteins[J]. Food & Function, 2021, 12(22):11214-11228.

[21]
周俊明, 李敏利, 孙博, 等. 基于肠道菌群探讨维生素A缺乏对小鼠肠道屏障及炎症水平的影响[J]. 医学研究生学报, 2021, 34(1):20-25.

ZHOU J M, LI M L, SUN B, et al. Effect of vitamin A deficiency on intestinal barrier and inflammation in mice based on intestinal flora[J]. Journal of Medical Graduate Students, 2021, 34(1):20-25. (in Chinese)

[22]
魏立民. VA、VE及其互作效应对0-3周龄北京鸭生产性能、血液生化指标和骨骼发育的影响研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2008.

WEI L M. Effects of vitamin A and E,and their interaction on growth performance,blood biochemical parameter and bone development in 0-3 weeks Pekin ducklings[D]. Master’s Thesis. Yangling: Northwest A & F University, 2008. (in Chinese)

[23]
LUISSINT A C, PARKOS C A, NUSRAT A. Inflammation and the intestinal barrier:leukocyte-epithelial cell interactions,cell junction remodeling, and mucosal repair[J]. Gastroenterology, 2016, 151(4):616-632.

DOI

[24]
雷泓, 宋云林. 肠屏障功能障碍发病机制的研究进展[J]. 医学综述, 2021, 27(14):2715-2720.

LEI H, SONG Y L. Research progress in pathogenesis of intestinal barrier dysfunction[J]. Medical Recapitulate, 2021, 27(14):2715-2720. (in Chinese)

[25]
QIN C C, LOU G H, YANG Y, et al. Macrophage inflammatory protein-2 in high mobility group box 1 secretion of macrophage cells exposed to lipopolysaccharide[J]. Cellular Physiology and Biochemistry:International Journal of Experimental Cellular Physiology, Biochemistry,and Pharmacology, 2017, 42(3):913-928.

DOI

[26]
COURTNEY C M, ONUFER E J, MCDONALD K G, et al. Small bowel resection increases paracellular gut barrier permeability via alterations of tight junction complexes mediated by intestinal TLR4[J]. The Journal of Surgical Research, 2021, 258:73-81.

DOI

[27]
HOANG T X, JUNG J H, KIM J Y. All-trans retinoic acid enhances bacterial flagellin-stimulated proinflammatory responses in human monocyte THP-1 cells by upregulating CD14[J]. BioMed Research International, 2019, 2019:8059312.

[28]
ROSSER E C, MAURI C. Regulatory B cells:origin,phenotype,and function[J]. Immunity, 2015, 42(4):607-612.

DOI

[29]
RODERFELD M, WEISKIRCHEN R, WAGNER S, et al. Inhibition of hepatic fibrogenesis by matrix metalloproteinase-9 mutants in mice[J]. The FASEB Journal, 2006, 20(3):444-454.

DOI

[30]
吴易. 靶向细胞凋亡抑制蛋白通过增加中性粒细胞来源的MMP9表达减轻CCl4诱导的肝纤维化[D]. 博士学位论文. 广州: 南方医科大学, 2022.

WU Y. Targeting clAPs attenuates CCl4-induced liver fibrosis by increasing MMP9 expression derived from neutrophils[D]. Ph.D.Thesis. Guangzhou: Southern Medical University, 2022. (in Chinese)

[31]
LO H M, WANG S W, CHEN C L, et al. Effects of all-trans retinoic acid,retinol,and β-carotene on murine macrophage activity[J]. Food & Function, 2014, 5(1):140-148.

[32]
ZININGA T, RAMATSUI L, SHONHAI A. Heat shock proteins as immunomodulants[J]. Molecules, 2018, 23(11):2846.

DOI

[33]
LEE J S, JUNG W K, JEONG M H, et al. Sanguinarine induces apoptosis of HT-29 human colon cancer cells via the regulation of Bax/BCL-2 ratio and caspase-9-dependent pathway[J]. International Journal of Toxicology, 2012, 31(1):70-77.

DOI PMID

[34]
PERLMAN H, ZHANG X, CHEN M W, et al. An elevated Bax/BCL-2 ratio corresponds with the onset of prostate epithelial cell apoptosis[J]. Cell Death and Differentiation, 1999, 6(1):48-54.

PMID

[35]
BONO M R, TEJON G, FLORES-SANTIBAÑEZ F, et al. Retinoic acid as a modulator of T cell immunity[J]. Nutrients, 2016, 8(6):349.

DOI

[36]
KUMAR S, SANDELL L L, TRAINOR P A, et al. Alcohol and aldehyde dehydrogenases:retinoid metabolic effects in mouse knockout models[J]. Biochimica et Biophysica Acta, 2012, 1821(1):198-205.

[37]
杨莉琴. RA在Fmr1敲除小鼠的社会新颖性中的作用机制研究[D]. 硕士学位论文. 贵阳: 贵州大学, 2022.

YANG L Q. Research on the Mechanism of RA in the social novelty of Fmr1 knockout mice[D]. Master’s Thesis. Guiyang: Guizhou University, 2022. (in Chinese)

[38]
HATCHER J E, ISOHERRANEN N. The role of CYP26 enzymes in retinoic acid clearance[J]. Expert Opinion on Drug Metabolism & Toxicology, 2009, 5(8):875-886.

[39]
CHAMBON P. A decade of molecular biology of retinoic acid receptors[J]. The FASEB Journal, 1996, 10(9):940-954.

DOI

[40]
BALMER J E, BLOMHOFF R. Gene expression regulation by retinoic acid[J]. Journal of Lipid Research, 2002, 43(11):1773-1808.

DOI PMID

[41]
ORSOLITS B, BORSY A, MADARÁSZ E, et al. Retinoid machinery in distinct neural stem cell populations with different retinoid responsiveness[J]. Stem Cells and Development, 2013, 22(20):2777-2793.

DOI PMID

Outlines

/