RESEARCH PAPER

Study on Requirement of Vitamin D3 in Diets for Red Swamp Crayfish (Procambarus clarkii)

  • YANG Xingsi , 1, 2 ,
  • MA Shihao 1, 2 ,
  • XIE Shouqi 3 ,
  • LIU Yangyang 2 ,
  • LUO Kai 1 ,
  • GAO Weihua , 2, * ,
  • TIAN Juan , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Yangtze University, Jingzhou 434024, China
  • 2 Yangtze River Fisheries Research Institute, Chinese Academy of Fishery Sciences, Wuhan 430223, China
  • 3 Institute of Hydrobiology, Chinese Academy of Sciences, Wuhan 430070, China
* GAO Weihua, associate professor, E-mail: ;
TIAN Juan, professor, E-mail:

Received date: 2025-07-04

  Online published: 2026-01-13

Abstract

To investigate the dietary vitamin D3 requirement of red swamp crayfish (Procambarus clarkii), a feeding trial was conducted using 270 crayfish with an initial body weight of (4.33±0.01) g. Six vitamin D3 supplementation levels were set in the basal diet: 0 (control group, measured value 2 700 IU/kg, designated as D1 group), 3 000 (measured value 6 160 IU/kg, designated as D2 group), 6 000 (measured value 9 200 IU/kg, designated as D3 group), 12 000 (measured value 15 300 IU/kg, designated as D4 group), 24 000 (measured value 29 700 IU/kg, designated as D5 group), and 48 000 IU/kg (measured value 55,100 IU/kg, designated as D6 group). Each group had 3 replicates with 15 crayfish per replicate, and the trial lasted for 8 weeks. Results showed as follows: the weight gain rate (WGR), specific growth rate (SGR), and feed conversion ratio (FCR) in the D5 group showed the optimal values, with significant differences compared with the D1 group (P<0.05); compared with the D1 group, the activities of hepatopancreatic protease, lipase, and amylase in the D5 group were significantly increased (P<0.05), and the hepatopancreatic B cell frequency, intestinal villus length and width were significantly increased (P<0.05); the calcium and phosphorus contents in the hepatopancreas and carapace increased with the elevation of dietary vitamin D3 supplementation level, with the D5 group achieving the maximum values that were significantly higher than those in the D1 group (P<0.05). Compared with the D1 group, the relative mRNA expression levels of hepatopancreatic molting-related genes [chitinase (CHI), ecdysone receptor (ECR), retinoic acid X receptor (RXR)] and immune-related genes [Toll-like receptor 2 (TLR2), anti-lipopolysaccharide factor 2 (ALF2), lysozyme (LZM), myeloid differentiation factor 88 (MyD88)] in the D5 group were all significantly upregulated (P<0.05), while the relative mRNA expression level of molt-inhibiting hormone (MIH) was significantly downregulated (P<0.05). In conclusion, dietary vitamin D3 supplementation can improve the growth performance, intestinal development, digestive capacity, and non-specific immunity of Procambarus clarkii. Based on quadratic regression analysis, the suitable dietary vitamin D3 requirement for Procambarus clarkii is determined to be 33 117 to 35 032 IU/kg.

Cite this article

YANG Xingsi , MA Shihao , XIE Shouqi , LIU Yangyang , LUO Kai , GAO Weihua , TIAN Juan . Study on Requirement of Vitamin D3 in Diets for Red Swamp Crayfish (Procambarus clarkii)[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 546 -563 . DOI: 10.12418/CJAN2026.043

克氏原螯虾(Procambarus clarkii),俗称小龙虾,具有食性广、抗逆性强、生长周期短等特点[1]。2024年全国克氏原螯虾养殖总产量达344.76万t,占淡水养殖总产量的9.76%,其主导养殖模式为稻虾综合种养,占比高达85.25%[2]。尽管养殖规模庞大,但由于缺乏统一的饲料评估体系,市售克氏原螯虾配合饲料质量参差不齐,已成为制约产业健康发展的关键问题之一[3]。近年研究揭示微量营养素(如维生素、矿物元素等)对克氏原螯虾的生长性能和健康状态具有重要的调控作用。研究表明,克氏原螯虾摄入适宜维生素C(265.67 mg/kg),可促进生长,并增强非特异性免疫、抗氧化能力和抗病能力[4]。饲料中添加120 mg/kg维生素E可影响克氏原螯虾的生长性能、生理指标及肌肉营养品质[5]。在饲料中添加适宜羟基蛋氨酸锌(Zn-MHA,60 mg/kg)可有效改善克氏原螯虾的生长性能、免疫反应、抗氧化能力以及肠道微生物的丰富度和多样性[6]
甲壳动物生长与其蜕壳周期呈显著正相关。蜕壳不仅是其生长发育的关键标志,更直接影响养殖效益——蜕壳障碍会直接导致个体发育迟滞、抗逆能力下降,甚至引发死亡[7]。在饲料中添加适宜的胆固醇(0.50%)有利于功能性脂肪酸积累,调节脂质代谢,进而通过改善胆固醇转运促进蜕皮激素信号通路,最终提高克氏原螯虾的蜕壳率和生长速度[8]。因此,鉴于当前饲料质量参差不齐的现实,精准确定克氏原螯虾对营养素(如蜕壳相关的微量营养素)的需求量,是保障其顺利蜕壳和健康生长的关键前提。
维生素D(VD,含VD3与VD2)是水产动物必需的微量元素之一,对维持钙、磷稳态和骨骼健康至关重要,是影响甲壳动物蜕壳过程的关键营养素。在鱼类和甲壳类动物的研究中发现,VD3是VD家族中被发现的主要活性形式[9]。研究表明,外源性VD3的生物效价通常高于VD2,在调控肠道和肾脏钙、磷吸收以及骨钙动员过程中发挥重要作用[10-11]。然而,不同甲壳动物对VD3的最适需求存在显著差异:凡纳滨对虾(Litopenaeus vannamei)在低盐度条件下基于全虾粗灰分含量确定为6 366 IU/kg[12];斑节对虾(Penaeus monodon)对VD3最适需求量为4 000 IU/kg[13];饲料中添加19 200 IU/kg VD3可提升凡纳滨对虾肝胰腺和甲壳的钙、磷含量,增强其抗氧化能力和免疫反应,并影响脂质代谢[14]。这些研究共同表明,VD3不仅影响甲壳动物的生长性能[13-15],还涉及其抗氧化能力[15]、钙、磷代谢[16]和脂质代谢[17]
针对克氏原螯虾,现有研究报道饲料VD3水平(5 460~9 230 IU/kg)可影响其肠道形态结构,提高脂肪酶活性和肠道微生物多样性[18]。然而,关于VD3对克氏原螯虾蜕壳生长的最适需要量,及其如何影响非特异性免疫功能,目前尚缺乏系统研究。因此,本研究旨在获得克氏原螯虾幼虾对饲料VD3的精准需要量,并全面评估对其生长性能、非特异性免疫及蜕壳相关基因表达的影响,为优化其饲料配方和蜕壳调控提供科学依据。

1 材料与方法

1.1 试验饲料

以鱼粉、豆粕、花生粕、菜籽粕、棉籽蛋白为蛋白质源,以鱼油、玉米油和大豆卵磷脂为脂肪源,以面粉为糖源,配制基础饲料,其组成及营养水平见表1。本试验参照凡纳滨对虾[12]、斑节对虾[13]、克氏原螯虾[18]等甲壳类动物的VD3最适需要量设置添加梯度,在基础饲料中添加不同水平的VD3(纯度≥100 000 IU/g),具体添加水平分别为0(对照组)、3 000、6 000、12 000、24 000、48 000 IU/kg,对应6组试验饲料(依次记为D1~D6组)的VD3实测值分别为2 700、6 160、9 200、15 300、29 700、55 100 IU/kg。VD3含量参照GB/T 17818—2025中的方法进行测定。原料经过粉碎机粉碎后用80目筛网过滤,准确称量后采用逐级扩大法充分混匀,随后使用F-26双螺旋压条机(广州华工光机电科技有限公司)加工成直径2 mm的条状饲料。接着,在全封闭电热烘箱中以90 ℃熟化20 min,再经履带式干燥机(常州苏正干燥设备有限公司)在60 ℃下干燥2 h。最后,用破碎机将饲料加工成3~4 mm的圆柱状颗粒,并置于-20 ℃冰箱储存备用。
表1 饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of diets (DM basis) g/kg

项目
Items
组别Groups
D1 D2 D3 D4 D5 D6
原料Ingredients
鱼粉Fish meal 50.00 50.00 50.00 50.00 50.00 50.00
豆粕Soybean meal 150.00 150.00 150.00 150.00 150.00 150.00
花生粕Peanut meal 150.00 150.00 150.00 150.00 150.00 150.00
面粉Wheat flour 250.00 250.00 250.00 250.00 250.00 250.00
菜籽粕Rapeseed meal 150.00 150.00 150.00 150.00 150.00 150.00
棉籽蛋白Cottonseed protein 40.00 40.00 40.00 40.00 40.00 40.00
褐藻酸钠Sodium alginate 20.00 20.00 20.00 20.00 20.00 20.00
磷酸二氢钙Ca(H2PO4)2 23.00 23.00 23.00 23.00 23.00 23.00
酵母膏Yeast cream 20.00 20.00 20.00 20.00 20.00 20.00
鱼油Fish oil 30.00 30.00 30.00 30.00 30.00 30.00
玉米油Corn oil 30.00 30.00 30.00 30.00 30.00 30.00
大豆卵磷脂Soybean lecithin 10.00 10.00 10.00 10.00 10.00 10.00
维生素预混料Vitamin premix1) 10.00 10.00 10.00 10.00 10.00 10.00
胆固醇Cholesterol 5.00 5.00 5.00 5.00 5.00 5.00
矿物质预混料Mineral premix2) 10.00 10.00 10.00 10.00 10.00 10.00
维生素C Vitamin C 3.00 3.00 3.00 3.00 3.00 3.00
氯化胆碱Choline chloride 2.00 2.00 2.00 2.00 2.00 2.00
壳聚糖Chitosan 1.00 1.00 1.00 1.00 1.00 1.00
虾青素Astaxanthin 0.40 0.40 0.40 0.40 0.40 0.40
膨润土Bentonite 38.00 37.97 37.94 37.88 37.76 37.52
维生素D3 Vitamin D3 0.03 0.06 0.12 0.24 0.48
L-苏氨酸L-Thr 3.60 3.60 3.60 3.60 3.60 3.60
L-赖氨酸L-Lys 3.00 3.00 3.00 3.00 3.00 3.00
蛋氨酸二肽Met-Met 1.00 1.00 1.00 1.00 1.00 1.00
合计Total 1 000.00 1 000.00 1 000.00 1 000.00 1 000.00 1 000.00
营养水平Nutrient levels3)
粗蛋白质Crude protein 346.34 347.53 345.32 347.88 348.08 344.26
粗脂肪Crude lipid 92.05 93.89 95.30 94.96 95.00 94.61
粗灰分Ash 107.26 107.57 105.80 104.02 104.92 104.77
总能Gross energy/(MJ/kg) 18.86 18.81 18.79 18.72 18.90 18.90
维生素D3 Vitamin D3/(IU/kg) 2 700 6 160 9 200 15 300 29 700 55 100

1)每千克维生素预混料含有One kg of vitamin premix contained the following: VA 4 g, VE 10 g,VK3 10 g,VB1 10 g,VB2 10 g,VB6 20 g,VB12 0.01 g,VC 20 g,烟酸nicotinic acid 40 g,生物素biotin 0.2 g,泛酸钙calcium pantothenate 20 g,叶酸folic acid 0.5 g,肌醇inositol 400 g,再用微晶纤维素添加至1 kg microcrystalline cellulose was subsequently supplemented to 1 kg。

2)每千克矿物质预混料含有One kg of mineral premix contained the following:Na2SeO3·5H2O 0.08 g,KIO3 0.6 g,CuCl2·2H2O 2 g,CoCl2·6H2O 2 g,MnSO4·H2O 20 g,FeSO4·7H2O 50 g,ZnSO4·7H2O 60 g,NaCl 100 g,MgSO4200 g,KH2PO4 320 g,再用微晶纤维素添加至1 kg microcrystalline cellulose was subsequently supplemented to 1 kg。

3)营养水平为测定值。Nutrient levels were measured values.

1.2 试验虾的选择

克氏原螯虾在中国广泛养殖,未被列为濒危或保护物种。所有动物护理及使用程序均经长江水产研究所动物伦理委员会批准(依据2018年7月20日颁布的YFI 2018-40号文件)。试验虾购自于湖北省天门市小龙虾虾苗繁殖场,养殖试验在中国水产科学研究院长江水产研究所室内养殖系统中进行。虾运回后,转移到养殖水箱(1.20 m×0.80 m×0.26 m,水体积为250 L)中暂养2周,暂养期间以对照组饲料进行投喂,使其适应试验饲料和试验条件。暂养结束后进行正式养殖试验,试验前将试验虾禁食24 h,挑选肢体健全、体质健壮、大小均匀、初始平均体重为(4.33±0.01) g的小龙虾280尾作为试验虾,随机选取10尾,作为初始全虾样品于-20 ℃冰箱保存待测。剩余270尾随机分为6组,每组3个重复,每个重复15尾。

1.3 饲养管理

试验虾放入持续增氧的养殖箱中,每个养殖箱中放入一定数量的PVC管和塑料网作为遮蔽物。保证水体溶氧含量>5 mg/L,pH为8.1~8.3,氨氮含量<0.2 mg/L,亚硝酸盐含量<0.1 g/L,水温26~28 ℃。每天在08:00和18:00定时饱食投喂,每日根据虾体生长、摄食和水温等环境状况及时调整投饲量。2 h后收集残饵,并烘干称重。若有死虾,及时捞出,并称重记录。每天换水1/3,早晚喂食前使用虹吸法清理粪便。养殖试验持续8周。

1.4 样品采集和分析

养殖试验结束后,按照标准程序处理样品,首先克氏原螯虾禁食24 h,按照组别依次收集并测定全虾质量,统计每个试验桶存活数量。每个养殖箱随机取2尾虾,-20 ℃冰箱保存,用于测定全虾的基本营养成分。每桶随机取10尾虾,先用一次性无菌注射器将血液从围心腔抽出,储存在1.5 mL的离心管中,4 ℃下静置4 h后离心(14 400×g,4 ℃,30 min),吸取上清于-80 ℃保存,用于血清生化指标和钙、磷含量检测。接着这10尾虾按照顺序采集肝胰腺、肠道、肌肉和虾壳等组织,具体操作如下:解剖试验虾,分离肝胰腺组织并准确称重用于计算肝体比(HSI),随后分别置于-20和-80 ℃保存,用于消化酶活性、抗氧化酶活测定,钙、磷含量检测及基因定量分析;分离肠道组织,置于-20 ℃保存,用于消化酶活性测定;取肝胰腺、肠道固定在4%多聚甲醛中,用于制备苏木精-伊红(HE)染色切片;分离肌肉组织并准确称重用于计算腹部含肉率(FC),随后置于-20 ℃冰箱保存,用于肌肉基本营养成分的测定,最后收集虾壳进行钙、磷含量检测。剩余虾按照以上方法取出肝胰腺、肠道、肌肉和虾壳组织,置于-80 ℃冰箱保存备用。

1.4.1 生长性能

根据测定的生长数据计算克氏原螯虾的增重率(WGR)、特定生长率(SGR)、饲料系数(FCR)、HSI、存活率(SR)、FC,计算公式如下:
WGR(%)=100×(Wt-W0)/W0;
SGR(%/d)=100×(lnWt-lnW0)/t;
FCR=Wf/(WtNt-W0N0+Wd);
HSI(%)=100×Wh/Wt;
SR(%)=100×Nt/N0;
FC(%)=100×Wm/Wt
式中:Wt为终末体质量(g);W0为初始体质量(g);Nt为终末尾数;N0为初始尾数;t为试验天数(d);Wf为饲料摄入量(g);Wd为死亡总重(g);Wh为肝胰腺重(g);Wm为虾尾部肌肉重(g)。

1.4.2 基本营养成分

全虾、肌肉及饲料的基本成分均参照国际标准方法(AOAC, 2023)进行分析。其中,饲料水分含量采用105 ℃恒温干燥失重法测定;肌肉与全虾的水分含量通过德国Marin Christ Corporation真空冷冻干燥机,采用冷冻干燥法测定;粗蛋白质含量采用全自动凯氏定氮仪(Kjelflex K-360,BUCHI Labortechnik AG,瑞士)测定总氮含量后,按公式(总氮×6.25)计算得出;粗脂肪含量采用索氏抽提法测定;粗灰分含量采用灼烧称重法测定;饲料总能利用氧弹式量热法(SDC311量热仪,湖南三德科技股份有限公司),参照GB/T 45104—2024中方法测定;饲料维生素D3含量采用皂化提取法(高效液相色谱仪LC-20ADXR,岛津,日本),参照GB/T 17818—2010中方法测定。

1.4.3 肝胰腺和肠道组织形态

取新鲜肝胰腺和肠道组织置于装有4%甲醛固定液的5 mL离心管中固定48 h后,用乙醇进行脱水,用二甲苯进行清洗,然后包埋于石蜡中进行切片,脱蜡处理后,进行苏木精-伊红(HE)染色。使用光学显微镜(Olympus BX53,日本)观察切片并拍照,并使用Image-J软件对HE染色结果进行肠绒毛宽度和绒毛长度分析及肝胰腺B、R细胞数量统计。

1.4.4 血清生化指标

血清总蛋白(TP)、总胆固醇(TCHO)、甘油三酯(TG)、葡萄糖(GLU)、白蛋白(ALB)的含量,以及谷草转氨酶(AST)、谷丙转氨酶(ALT)、碱性磷酸酶(ALP)的活性,均采用日本Sysmex Corporation的自动生化分析仪(型号BX-3010)测定,所用试剂均购自日本Sysmex Corporation公司。

1.4.5 肝胰腺、虾壳和血清钙、磷含量

称取虾壳样本,经真空冷冻干燥机冷冻干燥后,按试剂盒说明书完成前处理备用;肝胰腺、虾壳及血清中的钙、磷含量均采用南京建成生物工程研究所生产的试剂盒测定,具体操作步骤详见对应试剂盒说明书。

1.4.6 消化酶活性

分别精确称取0.2 g(精确至小数点后4位)肠道或肝胰腺组织,各加入9倍体积生理盐水,使用玻璃匀浆器(Biaoma FJ-150)在冰浴条件下进行组织匀浆。匀浆后于4 ℃、654×g条件下低温离心10 min,收集上清液。采用BCA法测定总蛋白(TP)含量,福林酚试剂法测定总蛋白酶活性,甲基试卤灵底物法测定脂肪酶(LPS)活性,碘显色法测定淀粉酶(AMS)活性。上述检测所用试剂盒均购自南京建成生物工程研究所。

1.4.7 抗氧化指标

精确称取0.2 g(精确至小数点后 4 位)新鲜肝胰腺组织,加入9倍体积预冷生理盐水,使用玻璃匀浆器(Biaoma FJ-150)在冰浴条件下进行组织匀浆。匀浆后于4 ℃、654×g条件下低温离心10 min,收集上清液。丙二醛(MDA)含量采用TBA法测定,总抗氧化力(T-AOC)采用比色法测定,过氧化氢酶(CAT)活性采用钼酸铵法测定,超氧化物歧化酶(SOD)活性采用WST-1法测定。以上各项指标均使用南京建成生物工程研究所的试剂盒进行检测。

1.4.8 基因mRNA相对表达量

将-80 ℃保存的肝胰腺样品迅速转移至含1 mL TRIzol RNA提取液(Life Technologies,美国)的离心管中,匀浆后进行RNA提取。提取完成后,通过1%琼脂糖凝胶电泳鉴定RNA完整性,使用NanoDrop2000(Thermo Fisher Scientific,美国)测定RNA浓度。当RNA浓度高于100 ng/μL且吸光度(OD)260/OD280 比值在1.8~2.0时,判定所提取RNA满足试验要求。按照PrimeScript® RT试剂盒(TaKaRa生物公司)说明书进行反转录合成cDNA,依据SYBR® Premix Ex TaqTM试剂盒(TaKaRa生物公司)操作说明对目的基因进行荧光定量分析,试验所用引物由生工生物工程股份有限公司合成(表2)。PCR扩增条件设定为:95 ℃预变性5 min;随后进行40个循环,每个循环包含95 ℃变性10 s、60 ℃退火30 s,升温与降温速率均为1.6 ℃/s。采用2-ΔΔCt法计算目的基因的mRNA相对表达量,其中蜕皮相关基因包括几丁质酶(CHI)、蜕皮激素受体(ECR)、维甲酸X受体(RXR)、蜕皮抑制激素(MIH),免疫相关基因包括Toll样受体2(TLR2)、抗脂多糖因子2(ALF2)、溶菌酶(LZM)、髓样分化因子88(MyD88);以18s rRNA作为内参基因,将对照组各目的基因的表达量设定为1,其余组基因表达量均相对于对照组进行计算。
表2 荧光定量PCR引物序列

Table 2 Primer sequences used for quantitative real-time PCR

项目
Items
引物序列
Primer sequences (5'—3')
序列号
Accession No.
蜕皮调控因子Molting regulatory factors
几丁质酶CHI F:TTTGACTCGGTGGGTGCT
R:TGTATGGTCCAGGCTTTCC
JQ964138.1
蜕皮激素受体ECR F:GCTCGGACGCAGAGATTCAA
R:GAAAGTTTTCGCCGCCGATG
KX673814.1
维甲酸X受体RxR F:CACAAGTTTCCAGCCCAAGC
R:GCTTGGCCCATTCTACCAGT
JX003647.1
蜕皮抑制激素MIH F:CTCCCAAGATCACAGCGTCA
R:CAGTTCAAGGTCGAGTCCCA
MK820025.1
免疫调控因子Immune regulatory factors
Toll样受体2 TLR2 F:GAAATTCCGAAGGAGACGC
R:TCATGTGGACGCCAATAACA
XM_045726247.1
抗脂多糖因子2 ALF2 F:GGTTCCATCATCGACCACTTT
R:CACCCAGGACACCACATTTTA
XM_045737321.1
溶菌酶LZM F:TGACGATTGCTTAGGGTGC
R:GCTTCATTCCAGTAGGGTTTAG
XM_045753417.1
髓样分化因子88 MyD88 F:TGGTTGAGAAATTGGAAGGG
R:AAAACTCGGGTGACAAGACG
XM_045768995.1
内参基因Reference gene
18S rRNA
F:TCCGCATCACACTCACGT
R:TGGAACCCTCTCCACAGG
KR135172

1.5 数据统计分析

试验数据采用GraphPad Prism 8软件进行统计分析,分析流程如下:首先进行正态分布检验与方差齐性检验;随后通过正交多项式对比分析,探究数据随VD3添加水平增加呈现的线性和/或二次曲线趋势;最后采用单因素方差分析(one-way ANOVA),并结合Tukey’s多重比较法进行组间差异检验。差异显著水平设定为P<0.05,所有结果均以平均值±标准差表示。柱状图借助GraphPad Prism 8绘制,回归折线图使用OriginLab 2019绘制。

2 结果与分析

2.1 饲料VD3水平对克氏原螯虾生长性能的影响

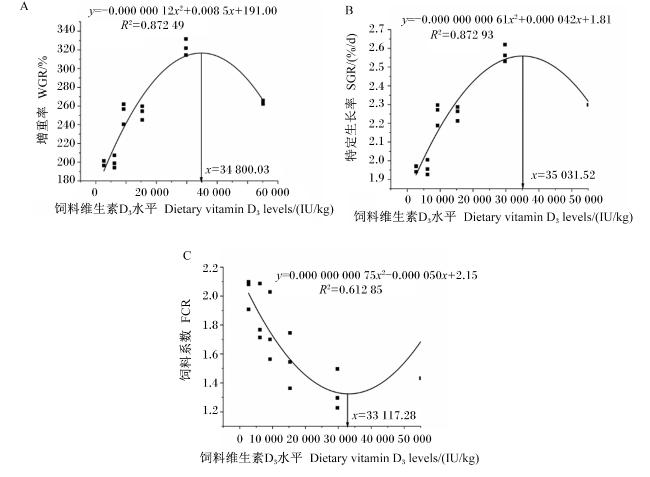
除D2组外,饲料VD3水平显著影响了FBW、WGR、SGR及FCR(P<0.05);FBW、WGR、SGR随VD3水平的升高均呈现显著线性和二次曲线变化(P<0.05),且均在D5组达到最大值;FCR随VD3水平的升高呈现显著二次曲线变化(P<0.05),在D5组时达到最小值。SR、HSI、FC在各组间均无显著差异(P>0.05)(表3)。根据WGR、SGR、FCR进行二次曲线回归分析,VD3的最适水平分别为34 800、35 032和33 117 IU/kg(图1)。
表3 饲料VD3水平对克氏原螯虾生长性能的影响

Table 3 Effects of dietary VD3 levels on growth performance of red swamp crayfish

项目
Items
组别Groups PP-value
D1 D2 D3 D4 D5 D6 方差分析
ANOVA
线性
Linear
二次
Quadratic
初始体重IBW/g 4.33±0.00 4.33±0.00 4.33±0.00 4.33±0.00 4.33±0.01 4.33±0.01 0.136 0.029 0.020
终末体重FBW/g 12.99±0.12a 13.00±0.30a 15.30±0.48b 15.31±0.32b 18.27±0.46c 15.82±0.11b <0.001 0.009 <0.001
增重率WGR/% 199.84±2.86a 200.18±6.67a 253.12±11.22b 253.47±7.50b 322.06±10.75c 264.49±2.80b <0.001 0.009 <0.001
存活率SR/% 82.22±3.85 82.22±3.85 82.22±3.85 84.44±3.85 84.44±3.85 82.22±3.85 0.923 0.891 0.531
特定生长率SGR/(%/d) 1.96±0.02a 1.96±0.04a 2.25±0.06b 2.25±0.04b 2.57±0.05c 2.31±0.01b <0.001 0.007 <0.001
饲料系数FCR 1.32±0.07c 1.31±0.10c 1.21±0.07ab 1.12±0.04a 1.09±0.04a 1.22±0.03ab 0.004 0.199 <0.001
肝体比HSI/% 7.75±0.30 7.12±0.06 7.40±0.47 7.48±0.52 6.98±0.35 7.53±0.37 0.210 0.849 0.214
腹部含肉率FC/% 12.74±0.94 13.29±0.64 13.31±1.08 13.57±0.16 12.88±0.34 12.72±0.88 0.663 0.388 0.523

同行数据肩标不同字母表示差异显著(P<0.05)。下表同。

Values with different letter superscripts in the same line are significantly different (P<0.05). The same as below.

图1 饲料VD3水平与克氏原螯虾关键生长指标的曲线模型分析

Fig.1 Analysis of curve model between dietary VD3 levels and key growth indicators of red swamp crayfish

2.2 饲料VD3水平对克氏原螯虾全虾及腹部肌肉基本营养成分的影响

随饲料VD3水平升高,克氏原螯虾全虾和腹部肌肉的粗蛋白质含量呈显著二次曲线变化(P<0.05),在D5组有最大值,且显著高于D1组(P<0.05);饲料VD3水平对全虾和腹部肌肉的水分、粗脂肪和粗灰分含量无显著影响(P>0.05)(表4)。
表4 饲料VD3水平对克氏原螯虾全虾及腹部肌肉基本营养成分的影响(湿重基础)

Table 4 Effects of dietary VD3 levels on whole body and abdominal muscle basic nutritional composition of red swamp crayfish (wet mass basis) g/kg

项目
Items
组别Groups PP-value
D1 D2 D3 D4 D5 D6 方差分析
ANOVA
线性
Linear
二次
Quadratic
全虾Whole body
水分Moisture 671.76±1.52 673.92±2.65 671.92±0.82 673.93±0.92 674.84±0.15 672.55±0.04 0.259 0.725 0.141
粗蛋白质Crude protein 137.49±1.50ab 133.77±1.73a 139.83±0.54ab 139.11±0.47ab 143.88±2.98b 136.68±1.06a 0.010 0.640 0.025
粗脂肪Crude lipid 35.56±1.63 34.55±1.12 35.55±0.19 35.94±1.46 36.66±1.25 34.23±1.32 0.476 0.567 0.159
粗灰分Ash 61.12±0.89 61.91±0.50 61.82±0.39 62.71±1.47 62.27±1.47 61.87±0.51 0.721 0.657 0.345
腹部肌肉Abdominal muscle
水分Moisture 773.58±1.11 772.52±0.30 771.58±1.46 771.90±1.31 772.34±0.57 772.70±0.71 0.272 0.971 0.332
粗蛋白质Crude protein 189.70±1.33a 190.60±2.11a 192.74±1.89ab 193.60±0.95ab 195.24±0.72b 192.06±2.25ab 0.016 0.203 <0.001
粗脂肪Crude lipid 3.34±0.02 3.33±0.03 3.34±0.05 3.34±0.04 3.33±0.05 3.34±0.08 1.000 0.929 0.992
粗灰分Ash 14.55±0.14 14.49±0.33 14.49±0.40 14.13±0.12 14.20±0.16 14.46±0.34 0.326 0.643 0.088

2.3 饲料VD3水平对克氏原螯虾血清生化指标的影响

随饲料VD3水平升高,克氏原螯虾血清TG含量呈显著线性和二次曲线变化(P<0.05),在D5组有最大值;血清TP、ALB、GLU含量及AST、ALT、ALP活性与饲料VD3水平呈显著二次曲线变化(P<0.05),其中,TP、ALB含量和ALP活性在D5组有最大值,AST活性在D5组有最小值,ALT活性在D5组有最小值,GLU含量在D4和D5组有最大值(表5) 。
表5 饲料VD3水平对克氏原螯虾血清生化指标的影响

Table 5 Effects of dietary VD3 levels on serum biochemical indexes of red swamp crayfish

项目
Items
组别Groups PP-value
D1 D2 D3 D4 D5 D6 方差分析
ANOVA
线性
Linear
二次
Quadratic
总蛋白TP/(g/L) 71.35±4.05a 74.93±2.43ab 80.76±4.11bc 85.67±1.13c 86.44±1.13c 75.94±0.17ab <0.001 0.528 <0.001
白蛋白ALB/(g/L) 1.52±0.02a 1.53±0.01a 1.53±0.03a 1.65±0.03b 1.68±0.01b 1.54±0.02a <0.001 0.435 <0.001
谷草转氨酶AST/(U/L) 25.33±0.58c 23.33±1.53bc 16.00±1.00a 14.67±0.58a 13.67±0.58a 21.67±1.15b <0.001 0.551 <0.001
谷丙转氨酶ALT/(U/L) 19.67±0.58c 18.67±0.58c 14.67±0.58b 12.00±1.00a 11.67±0.58a 20.00±1.00c <0.001 0.747 <0.001
碱性磷酸酶ALP/(U/L) 1.33±0.58a 1.33±0.58a 1.67±0.58a 1.67±0.58a 4.67±0.58b 1.67±0.58a <0.001 0.239 0.001
甘油三酯TG/(mmol/L) 0.39±0.01a 0.42±0.01b 0.39±0.01a 0.43±0.01bc 0.45±0.01c 0.43±0.01bc <0.001 0.007 <0.001
总胆固醇TCHO/(mmol/L) 0.23±0.01ab 0.22±0.01a 0.22±0.01a 0.25±0.01b 0.23±0.01ab 0.23±0.01ab 0.032 0.371 0.360
葡萄糖GLU/(mmol/L) 1.45±0.01a 1.57±0.01b 1.67±0.01c 1.69±0.01c 1.69±0.01c 1.46±0.01a <0.001 0.405 <0.001

2.4 饲料VD3水平对克氏原螯虾组织钙、磷含量的影响

随饲料VD3水平升高,克氏原螯虾肝胰腺钙、磷含量和虾壳的磷含量呈显著线性和二次曲线变化(P<0.05),其中肝胰腺的钙含量呈现先上升后下降的趋势,肝胰腺钙含量在D5组有最大值,肝胰腺和虾壳磷含量均呈现显著上升趋势,肝胰腺磷含量在D5组有最大值,虾壳磷含量在D5组有最大值;虾壳的钙含量和血清磷含量呈显著二次曲线变化(P<0.05),其中虾壳钙含量在D5组有最大值,血清磷含量在D4和D5组有最大值(表6)。
表6 饲料VD3水平对克氏原螯虾组织钙、磷含量的影响

Table 6 Effects of dietary VD3 levels on Ca and P contents in tissues of red swamp crayfish

项目
Items
组别Groups PP-value
D1 D2 D3 D4 D5 D6 方差分析
ANOVA
线性
Linear
二次
Quadratic
肝胰腺Hepatopancreas/(mmol/mg prot)

Calcium
313.41±7.78a 338.49±15.03a 519.20±9.00bc 496.61±12.25b 534.49±5.52c 514.79±9.85bc <0.001 0.007 <0.001

Phosphorus
837.56±13.76a 841.70±11.75a 1 032.82±25.71b 1 105.60±28.49c 1 140.26±34.11c 1 102.23±13.63c <0.001 0.002 <0.001
虾壳Carapace/(mmol/mg prot)

Calcium
4 162.76±124.98a 4 285.04±98.95ab 4 474.72±46.38b 4 783.16±87.24c 4 930.36±38.74c 4 435.68±77.31b <0.001 0.190 <0.001

Phosphorus
1 469.321±18.98a 1 410.05±39.76a 1 689.87±38.67b 1 725.13±32.83b 1 898.03±13.64c 1 847.88±25.91c <0.001 <0.001 <0.001
血清Serum/(mmol/L)

Calcium
4.75±0.04a 5.01±0.01b 4.99±0.02b 4.93±0.06b 4.79±0.01a 4.79±0.05a <0.001 0.091 0.213

Phosphorus
0.59±0.01a 0.71±0.01b 0.81±0.01c 0.86±0.01d 0.86±0.01d 0.57±0.01a <0.001 0.360 0.001

2.5 饲料VD3水平对克氏原螯虾肝胰腺及肠道消化酶活性的影响

随饲料VD3水平升高,肝胰腺中脂肪酶和肠道中淀粉酶活性呈显著线性和二次曲线变化(P<0.05),其中肝胰腺的脂肪酶活性D5组达到最大值,肠道淀粉酶活性在D4组达到最大值;肝胰腺中蛋白酶、淀粉酶活性和肠道中蛋白酶、脂肪酶活性呈显著二次曲线变化(P<0.05),其中肝胰腺的蛋白酶和淀粉酶活性在D5组达到最大值,肠道蛋白酶活性和脂肪酶活性分别在D5和D4组达到最大值(表7)。
表7 饲料VD3水平对克氏原螯虾肝胰腺及肠道消化酶活性的影响

Table 7 Effects of dietary VD3 levels on activities of digestive enzymes in hepatopancreas and intestines of red swamp crayfish

项目
Items
组别Groups PP-value
D1 D2 D3 D4 D5 D6 方差分析
ANOVA
线性
Linear
二次
Quadratic
肝胰腺Hepatopancreas
蛋白酶Protease/(U/mg prot) 63.27±1.33a 71.50±1.71b 78.92±1.67c 78.68±1.24c 79.96±0.89c 64.07±1.92a <0.001 0.443 <0.001
淀粉酶Amylase/(U/mg prot) 2.33±0.06a 2.75±0.02b 2.76±0.04b 2.77±0.04b 2.78±0.05b 2.31±0.04a <0.001 0.140 <0.001
脂肪酶Lipase/(U/g prot) 2.94±0.01a 2.92±0.02a 3.04±0.07a 3.39±0.06b 3.40±0.09b 3.26±0.04b <0.001 0.011 <0.001
肠道Intestine
蛋白酶Protease/(U/mg prot) 18.29±0.63a 20.48±0.39a 20.55±0.23b 25.18±0.39c 26.26±0.48c 20.74±0.21b <0.001 0.282 <0.001
淀粉酶Amylase/(U/mg prot) 0.43±0.00a 0.43±0.00a 0.45±0.00b 0.45±0.00c 0.45±0.00bc 0.45±0.00bc <0.001 0.009 <0.001
脂肪酶Lipase/(U/g prot) 2.40±0.08a 2.51±0.06ab 2.51±0.01ab 2.64±0.03b 2.63±0.05b 2.39±0.08a <0.001 0.596 <0.001

2.6 饲料VD3水平对克氏原螯虾肝胰腺抗氧化指标的影响

随饲料VD3水平升高,肝胰腺的T-AOC、SOD、CAT活性以及MDA含量均呈显著二次曲线变化(P<0.05),其中T-AOC和CAT活性在D5组有最大值,SOD活性在D5组有最大值,MDA含量则在D5组有最小值(表8)。
表8 饲料VD3水平对克氏原螯虾肝胰腺抗氧化指标的影响

Table 8 Effects of dietary VD3 levels on antioxidant indicators in hepatopancreas of red swamp crayfish

项目
Items
组别Groups PP-value
D1 D2 D3 D4 D5 D6 方差分析
ANOVA
线性
Linear
二次
Quadratic
总抗氧化能力
T-AOC/(U/mg prot)
0.32±0.01a 0.35±0.01a 0.39±0.01b 0.42±0.01c 0.42±0.00c 0.39±0.01b <0.001 0.050 <0.001
超氧化物歧化酶
SOD/(U/mg prot)
171.49±0.58a 182.58±4.73b 182.36±2.60b 187.93±0.69bc 189.98±0.98c 183.20±3.30bc <0.001 0.157 <0.001
过氧化氢酶
CAT/(U/mg prot)
3.09±0.07a 3.15±0.04a 3.60±0.02b 4.09±0.08c 4.22±0.10c 3.22±0.06a <0.001 0.657 <0.001
丙二醛
MDA/(nmol/mg prot)
15.28±0.38d 13.46±0.76c 10.11±0.29b 8.60±0.14a 8.32±0.50a 11.16±0.11b <0.001 0.110 <0.001

2.7 饲料VD3水平对克氏原螯虾肠道和肝胰腺组织形态的影响

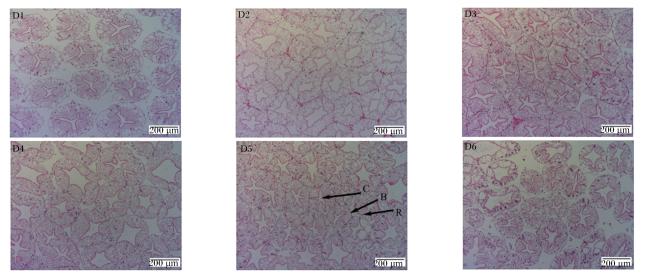
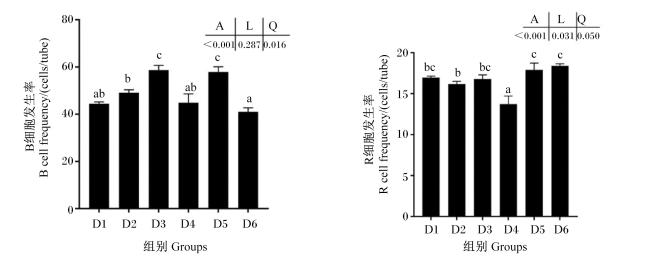
饲料VD3水平对克氏原螯虾肝胰腺组织形态的影响见图2。D5组克氏原螯虾肝小体排列紧密,细胞形状更规则,基底膜结构更加完整,管腔呈现规则的星形。而D1和D6组肝小体排列较为疏松且具有一定程度的萎缩。此外,随饲料VD3水平升高,克氏原螯虾肝胰腺中R细胞发生率呈显著线性变化(P<0.05),在D5和D6组有最大值,B细胞发生率在D3和D5组有最大值(图3)。
图2 饲料VD3水平对克氏原螯虾肝胰腺组织形态的影响

B:B细胞(分泌);R:R细胞(吸收);C:星形管腔。

Fig.2 Effects of dietary VD3 levels on morphology of hepatopancreas tissue of red swamp crayfish

B:B-cells (secreting); R:R-cells (absorbing); C: stellate lumen.

图3 克氏原螯虾肝胰腺B细胞和R细胞发生率

柱形图标注不同小写字母表示差异显著(P<0.05)。A表示单因素方差分析P值,L表示线性趋势P值,Q表示二次曲线趋势P值。下图同。

Fig.3 Frequency of B cells and R cells in hepatopancreas of red swamp crayfish

Different lowercase letters above the bars indicate significant difference (P<0.05). A represents the P-value of one-way analysis of variance (ANOVA), L denotes the P-value of linear trend, and Q stands for the P-value of quadratic trend. The same as below.

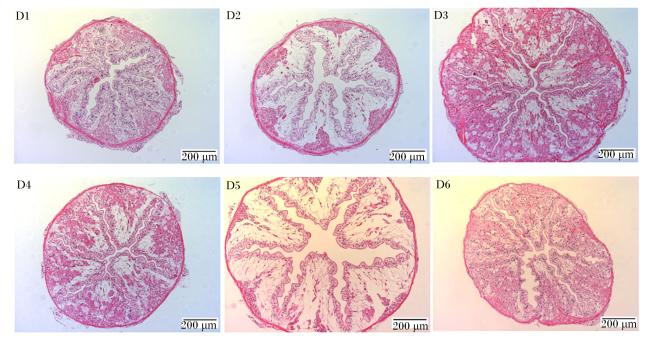
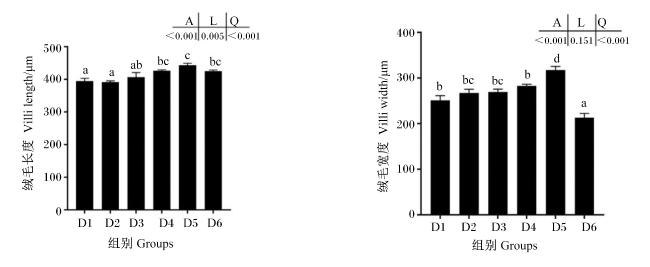
各组克氏原螯虾肠道形态结构完整,无畸形和病变现象,D5组克氏原螯虾肠道绒毛形状规则排列更为紧密,其表面小褶皱更为发达,结缔组织致密性更好,所包裹的肌肉束更加完整(图4)。随饲料VD3水平升高,肠道绒毛长度呈现线性和二次曲线变化(P<0.05),肠绒毛宽度呈显著二次曲线变化(P<0.05),均在D5组有最大值(图5)。
图4 饲料VD3水平对克氏原螯虾肠道组织形态的影响

Fig.4 Effects of dietary VD3 levels on intestinal tissue morphology of red swamp crayfish

图5 饲料VD3水平对克氏原螯虾肠绒毛长度和宽度的影响

Fig.5 Effects of dietaryVD3 levels on length and width of intestinal villi of red swamp crayfish

2.8 饲料VD3水平对克氏原螯虾免疫调控因子的影响

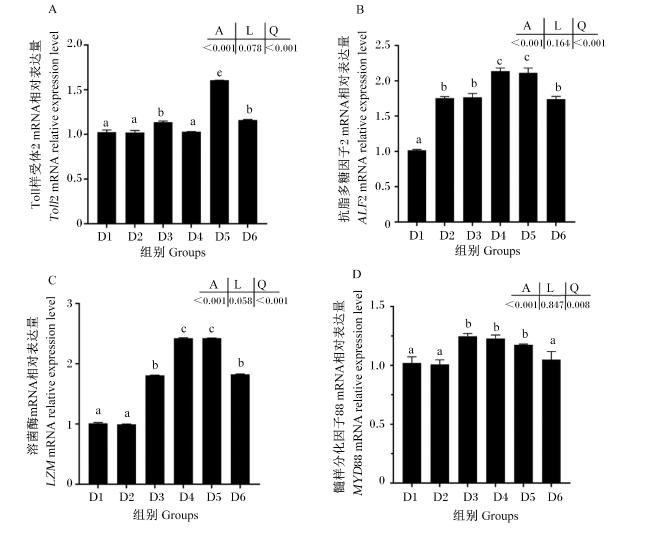
随饲料VD3水平升高,TLR2、ALF2、LZMMyD88 mRNA相对表达量均呈显著二次曲线变化(P<0.05),TLR2 mRNA相对表达量在D5组有最大值,ALF2、LZM mRNA相对表达量均在D4组达到最大值,MyD88 mRNA相对表达量在D3组达到最大值。与D1组相比,D5组肝胰腺中TLR2、ALF2、LZMMyD88 mRNA相对表达量显著上调(P<0.05)(图6)。
图6 饲料维生素D3水平对克氏原螯虾肝胰腺免疫调控基因的mRNA相对表达水平的影响

Fig.6 Effects of dietary VD3 levels on mRNA relative expression levels of immune-regulating genes in hepatopancreas of red swamp crayfish

2.9 饲料VD3水平对克氏原螯虾蜕皮调控因子的影响

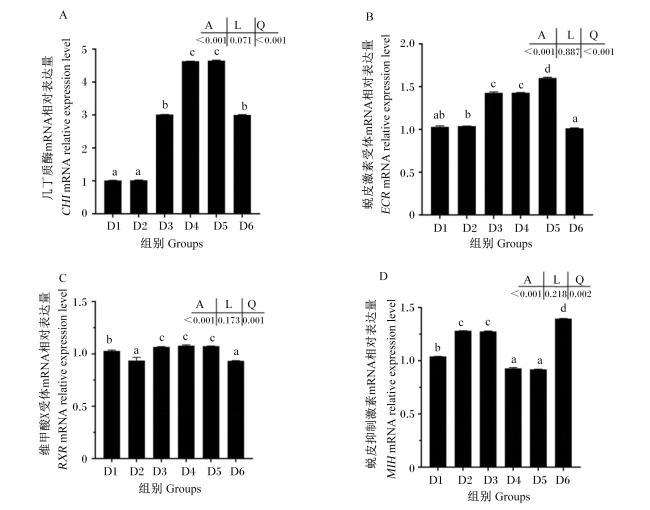
随饲料VD3水平升高,CHIECRRxRMIH mRNA相对表达量呈显著二次曲线变化(P<0.05),CHI mRNA相对表达量在D4和D5组达到最大值,ECR mRNA相对表达量在D5组有最大值,RxR mRNA相对表达量在D4组达到最大值;与D1组相比,D5组肝胰腺中CHIECRRxR mRNA相对表达量显著上调,MIH mRNA相对表达量显著下调(P<0.05)(图7)。
图7 饲料中维生素D3对克氏原螯虾肝胰腺蜕皮调控基因的mRNA相对表达水平的影响

Fig.7 Effects of dietary VD3 levels on mRNA relative expression levels of molt-regulating genes in hepatopancreas of red swamp crayfish

3 讨论

3.1 饲料VD3水平对克氏原螯虾生长性能的影响

本研究结果表明,饲料VD3水平对克氏原螯虾生长性能的影响呈现典型的剂量效应关系,D5组表现出最佳生长性能,而缺乏(2 700 IU/kg)或过量(55 100 IU/kg)均会抑制生长,通过二次回归分析模型得出克氏原螯虾VD3适宜需要量为33 117~35 032 IU/kg,显著高于凡纳滨对虾(6 366 IU/kg)[12]、斑节对虾(4 000 IU/kg)[13]、中华绒螯蟹仔蟹(Eriocheir sinensis)(9 000 IU/kg)[19]、日本沼虾(Macrobrachium nipponense)(7 000 IU/kg)[20]等甲壳动物,最适剂量较其他甲壳动物研究普遍高出3~7倍;是草鱼(Ctenopharyngodon idella)(5 000 IU/kg)[21]、团头鲂(Megalobrama amblycephala)(5 430 IU/kg)[22]、青鱼(Mylopharyngodon piceus)(535.29 IU/kg)[23]、吉富罗非鱼(GIFT)(259.8 IU/kg)[24]等鱼类的5~100倍。
克氏原螯虾的最佳VD3需求量高于其他水生动物。这种显著的种间差异可能与甲壳动物特有的周期性蜕壳生理机制[25]、试验设计参数(如基础饲料钙磷比、养殖水体硬度和天然饵料丰度)或个体发育阶段密切相关,特别是本试验的养殖环境为工厂化养殖,克氏原螯虾并不能从环境中获得VD3。同时,从生理机制层面分析克氏原螯虾对VD3的高需求可能源于其对钙稳态的双重调控需求。VD3通过促进肠道钙、磷吸收为甲壳动物周期性蜕壳提供关键物质基础——蜕壳过程中新表皮的形成需要大量钙质沉积[7]。本试验中,随着VD3水平(9 200~55 100 IU/kg)的增加,肝胰腺和虾壳钙、磷含量也随之增加,证实了VD3在克氏原螯虾钙、磷稳态中的作用。
钙和磷的吸收主要通过2种机制完成:一是主动的跨细胞转运途径,二是由紧密连接介导的被动细胞旁途径。1,25-二羟基维生素D[1,25(OH)2D]作为VD的活性激素形式,能够上调相关共转运蛋白的表达,从而显著增强组织对钙和磷的吸收能力[13]。与本研究类似,Shiau[13]发现饲料中添加0.48 mg/kg(19 200 IU/kg)VD3可提高凡纳滨对虾组织(肝胰腺、虾壳)钙和磷含量。25-OH-D3可调节凡纳滨对虾的钙、磷和脂质代谢,促进其生长、抗氧化和免疫力[16]。Dai等[12]也发现,在饲料中添加不同水平VD3(34.2~3 091.2 IU/kg)时,鲈鱼的全鱼钙和磷含量增加。
本研究中,肝胰腺CHIECRRxR mRNA相对表达量随VD3水平增加而上调的现象,证实了VD3可能通过激活CHI和ECR系统促进蜕壳进程[26]。过量VD3(55 100 IU/kg)引发的基因表达抑制提示其作用存在阈值效应,这可能与高剂量VD3导致钙超载,进而通过负反馈抑制Y-器官蜕皮激素合成有关[27]。上述结果表明,VD3作为固醇类激素前体,直接参与钙、磷代谢,通过调控周期性蜕壳行为(蜕壳发生和新壳合成)以促进克氏原螯虾周期性蜕壳,以此提升生长性能。相较于鱼类,甲壳动物VD3需求量显著提升的现象,本质上反映了不同类群动物外骨骼形成机制的进化差异。鱼类主要通过内源性钙化完成骨骼发育,而甲壳动物需要周期性分解旧表皮(涉及钙的再吸收)并同步构建新表皮(需要大量钙沉积)。这一过程不仅需要VD3维持钙、磷代谢稳态,还可能通过RxR与ECR的协同作用,将营养信号与内分泌调控网络相耦联[28]

3.2 饲料VD3水平对克氏原螯虾营养物质消化及肠道功能的影响

消化器官组织结构的完整性是维持正常消化功能的基础[29]。肝胰腺在克氏原螯虾消化过程中占主导地位,其通过肝小体中的B细胞(分泌消化酶)和R细胞(储存脂类与矿物质)协同完成营养物质的代谢循环[30]。本试验中,适宜VD3水平(29 700 IU/kg)使克氏原螯虾肝小体排列紧密,细胞形状规则结构更加完整。VD3缺乏(2 700 IU/kg)或过量(55 100 IU/kg)导致肝小体结构疏松萎缩,并伴随血清转氨酶活性升高及MDA积累,提示氧化应激引发的脂质过氧化损伤可能是肝胰腺功能受损的重要诱因。这一现象与甲壳类应激状态下活性氧(ROS)爆发导致的DNA损伤和细胞凋亡机制相符。值得注意的是,VD3的羟基化代谢产物具有类细胞膜结构特性,可通过降低膜流动性减少ROS对细胞膜的攻击[15],这为VD3缓解氧化应激提供了分子层面的解释。上述结果与中华绒螯蟹中VD3保护肝胰腺结构的结果[25]一致。同时本试验发现VD3水平为29 700 IU/kg时显著提高了肝小体中B细胞发生率,这也表明VD3能促进持肝胰腺组织发育,增强肝胰腺消化吸收能力。
肠道作为营养物质吸收的关键场所,其功能效率依赖于上皮微绒毛发育与血窦运输系统的完整性[31]。本试验发现,适宜VD3水平(29 700 IU/kg)能够促进肠道组织发育,说明VD3可能通过扩大吸收表面积和增强肠道蠕动效率,共同提升营养转运能力。类似现象在大菱鲆(Scophthalmus maximus)研究[32]中亦有报道。但李昱达等[18]研究结果与本试验有所差异,可能是研究的剂量跨度极大(170~81 420 IU/kg),且高剂量组(26 750~1 420 IU/kg)远超生理需求,可能引发VD3中毒(如上皮细胞凋亡、肌肉坏死),且幼虾的钙、磷沉积需求显著高于成虾,可能需要更高剂量VD3支持肠道钙吸收和外骨骼矿化。进一步分析发现,VD3对消化功能的提升不仅依赖器官结构改善,更与消化酶活性调控密切相关[33]。本试验发现,VD3可提高克氏原螯虾肝胰腺和肠道中蛋白酶、淀粉酶和脂肪酶活性,其机制可能与VD3-钙信号协同作用有关:一方面,VD3通过促进肠道钙吸收,激活钙依赖性蛋白酶(如胰蛋白酶原向胰蛋白酶的转化)[34];另一方面,VD3还可直接调控脂肪酶构象稳定性。刘树彬[25]的研究表明,VD3对脂肪酶活性的促进作用显著强于外源钙离子,提示其可能通过核受体[如维生素D受体(VDR)/RxR]介导的基因表达调控影响酶合成。此外,钙离子通过调节脂肪细胞代谢和肠上皮脂肪酸转运蛋白表达[35],进一步强化了VD3-钙轴对脂质消化的协同增效[16]。上述结果表明,VD3可能通过“结构-功能”双重调控机制:既维持消化器官形态完整以抵抗氧化损伤,又通过钙信号网络激活消化酶系统,最终实现营养利用效率的整体提升。

3.3 饲料VD3水平对克氏原螯虾非特异性免疫的影响

甲壳动物缺乏脊椎动物的特异性免疫系统,其先天免疫依赖于抗氧化防御系统和模式识别受体(PRR)介导的免疫应答协同作用[36]。本试验结果表明,VD3通过调控氧化应激与免疫相关基因表达的双重机制,显著增强克氏原螯虾的非特异性免疫能力。氧化应激是甲壳动物应对病原侵染的主要挑战之一[37]。饲料中VD3的缺乏(2 700 IU/kg)导致肝胰腺MDA含量显著升高,表明脂质过氧化损伤加剧,同时血清AST和ALT活性上升进一步印证了组织氧化损伤。与此同时,适宜VD3水平(15 300~29 700 IU/kg)显著提升T-AOC及SOD、CAT活性,其机制可能与VD3的羟基化代谢产物通过稳定细胞膜结构、减少ROS渗透有关[38]。然而,过量VD3(55 100 IU/kg)反而引发MDA积累,这与过量VD3在肝胰腺脂滴中蓄积可诱发脂毒性,破坏氧化还原平衡有关。这一剂量效应规律在凡纳滨对虾[13]、中华绒螯蟹[39]等甲壳类中均得到验证,也进一步解释了VD3过量或缺乏抑制生长的机理。
除抗氧化防御外,VD3还通过激活先天免疫信号通路增强宿主抗病能力[40]。本研究在克氏原螯虾中证实,适宜VD3水平(15 300~29 700 IU/kg)可显著上调肝胰腺中TLR2、MyD88、LZMALF2的mRNA相对表达量。其中,TLR2-MyD88信号轴作为先天免疫的核心通路,通过触发核因子-κB(NF-κB)等转录因子激活抗菌肽合成[41];而LZM和ALF2作为效应分子,可直接裂解病原体细胞壁并中和内毒素[42]。值得注意的是,VD3对免疫相关基因的调控作用呈现明显的剂量特异性:TLR2的mRNA相对表达量峰值出现在饲料VD3水平为 29 700 IU/kg 时;而ALF2和LZM的mRNA相对表达量,则在饲料VD3水平为 15 300~29 700 IU/kg 范围内维持较高水平,这可能与不同基因的启动子区域对VD3受体(VDR/RxR复合体)的响应阈值差异有关[43]。这一发现为甲壳动物VD3免疫调控的争议提供了新视角——尽管无脊椎动物缺乏适应性免疫系统,但VD3通过强化Toll通路与抗菌肽协同作用,可显著补偿其免疫防御短板[44]

4 结论

适宜饲料VD3水平可提高克氏原螯虾的生长性能、营养消化、肠道功能和非特异性免疫力。VD3可通过调控蜕壳相关基因的表达以促进克氏原螯虾周期性蜕壳,以此提升生长性能。根据FCR、WGR、SGR进行二次回归分析模型得出克氏原螯虾VD3适宜需要量为33 117~35 032 IU/kg。
[1]
任妮, 戴红君, 张琤琤, 等. 我国克氏原螯虾产业调查分析与发展对策建议[J]. 江苏农业科学, 2021, 49(19):241-246.

REN N, DAI H J, ZHANG C C, et al. Investigation and analysis of China’s crayfish industry and suggestions for development[J]. Jiangsu Agricultural Sciences, 2021, 49(19):241-246. (in Chinese)

[2]
全国水产技术推广总站, 中国水产学会. 中国小龙虾产业发展报告(2025)[J]. 中国水产, 2025, 596(7):10-16.

National Aquaculture Technology Promotion Center, Chinese Fisheries Society. Report on the development of China’s crayfish industry (2025)[J]. China Fisheries, 2025, 596(7):10-16. (in Chinese)

[3]
刘敏, 张海涛, 孙广文, 等. 克氏原螯虾营养需求与功能性饲料研究进展[J]. 广东饲料, 2021, 30(11):37-44.

LIU M, ZHANG H T, SUN G W, et al. Research progress of nutritional requirements and functional feed of Procambarus clarkii[J]. Guangdong Feed, 2021, 30(11):37-44. (in Chinese)

[4]
KONG F S, ZHU Y H, YU H J, et al. Effect of dietary vitamin C on the growth performance, nonspecific immunity and antioxidant ability of red swamp crayfish (Procambarus clarkii)[J]. Aquaculture, 2021, 541:736785.

[5]
石丰运, 陈明建, 随韶璞, 等. 维生素E对小龙虾生长性能、组织生理指标及肌肉营养成分的影响[J]. 中国饲料, 2024(20):71-74.

SHI F Y, CHEN M J, SUI S P, et al. Effects of vitamin E on growth performance,tissue physiological indices and muscle nutrients of crayfish[J]. China Feed, 2024(20):71-74. (in Chinese)

[6]
KONG D H, JI Y X, ZHANG B Y, et al. Effects of hydroxy methionine zinc on growth performance,immune response,antioxidant capacity,and intestinal microbiota of red claw crayfish (Procambarus clarkii)[J]. Fish & Shellfish Immunology, 2024, 144:109231.

[7]
CHEN H Y, DILLAMAN R M, ROER R D, et al. Stage-specific changes in calcium concentration in crustacean (Callinectes sapidus) Y-organs during a natural molting cycle,and their relation to the hemolymphatic ecdysteroid titer[J]. Comparative Biochemistry and Physiology Part A: Molecular & Integrative Physiology, 2012, 163(1):170-173.

[8]
TIAN H Y, YANG C C, YU Y B, et al. Dietary cholesterol level affects growth,molting performance and ecdysteroid signal transduction in Procambarus clarkii[J]. Aquaculture, 2020, 523:735198.

[9]
CHENG K, HUANG Y Q, WANG C F, et al. Physiological function of vitamin D3 in fish[J]. Reviews in Aquaculture, 2023, 15(4):1732-1748.

DOI

[10]
BAUR A C, BRANDSCH C, STEINMETZ B, et al. Differential effects of vitamin D3 vs vitamin D2 on cellular uptake,tissue distribution and activation of vitamin D in mice and cells[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2020, 204:105768.

[11]
JIANG J L, SUN H M, WANG R, et al. Effects of dietary phosphorus and vitamin D3 supplementation on growth performance,antioxidant capacity,lipid metabolism, and phosphorus transport of hybrid yellow catfish (Pelteobagrus fulvidraco♀×Pelteobagrus vachelli )[J]. Aquaculture Reports, 2025, 44:103054.

[12]
DAI T M, JIAO L F, TAO X Y, et al. Effects of dietary vitamin D3 supplementation on the growth performance,tissue Ca and P concentrations,antioxidant capacity,immune response and lipid metabolism in Litopenaeus vannamei larvae[J]. British Journal of Nutrition, 2022, 128(5):793-801.

DOI

[13]
SHIAU S Y, HWANG J Y. The dietary requirement of juvenile grass shrimp (Penaeus monodon) for vitamin D[J]. Journal of Nutrition, 1994, 124(12):2445-2450.

PMID

[14]
WEN M, LIU Y J, TIAN L X, et al. Vitamin D3 requirement in practical diet of white shrimp,Litopenaeus vannamei,at low salinity rearing conditions[J]. Journal of the World Aquaculture Society, 2015, 46(5):531-538.

DOI

[15]
YANG C Y, DU X D, HAO R J, et al. Effect of vitamin D3 on immunity and antioxidant capacity of pearl oyster Pinctada fucata martensii after transplantation:insights from LC-MS-based metabolomics analysis[J]. Fish & Shellfish Immunology, 2019, 94:271-279.

[16]
ZHU G D, LU K L, LAI Y T, et al. Effects of dietary 25-hydroxyvitamin D3 on growth,calcium-phosphorus metabolism,lipid metabolism and immunity of Litopenaeus vannamei at low salinity[J]. Aquaculture Reports, 2024, 35:101965.

[17]
PENG X Y, SHANG G H, WANG W Q, et al. Fatty acid oxidation in zebrafish adipose tissue is promoted by 1α,25(OH)2D3[J]. Cell Reports, 2017, 19(7):1444-1455.

DOI

[18]
李昱达, 黄凯, 罗雨萧, 等. 维生素D3对克氏原螯虾肠道组织结构、消化酶活性及肠道菌群的影响[J]. 饲料工业, 2025, 46(15):110-118.

LI Y D, HUANG K, LUO Y X, et al. Effect of vitamin D3 on intestinal tissue structure,digestive enzyme activity,and intestinal microbiota of Procambarus clarkii[J]. Feed Industry, 2025, 46(15):110-118. (in Chinese)

[19]
LIU S B, YU Q R, LIU J D, et al. The interaction between lipid and vitamin D3 impacts lipid metabolism and innate immunity in Chinese mitten crabs Eriocheir sinensis[J]. Fish & Shellfish Immunology, 2024, 147:109455.

[20]
徐杰. 饵料中添加维生素D对日本沼虾生长的影响[D]. 硕士学位论文. 保定: 河北大学, 2001.

XU J. The Effect of vitamin D in diet on the growth of Macrobrachium nipponense[D]. Master’s Thesis. Baoding: Hebei University, 2001. (in Chinese)

[21]
SHAFIQUE L, AFZAL M, SHAH S Z H, et al. Dietary formic acid and vitamin D3 as growth effective supplement for grass carp fingerlings[J]. Pakistan Journal of Zoology, 2019, 51(6):2385-2388.

[22]
MIAO L H, XIE J, GE X P, et al. Chronic stress effects of high doses of vitamin D3 on Megalobrama amblycephala[J]. Fish & Shellfish Immunology, 2015, 47(1):205-213.

[23]
WU C L, LU B, WANG Y L, et al. Effects of dietary vitamin D3 on growth performance,antioxidant capacities and innate immune responses in juvenile black carp Mylopharyngodon piceus[J]. Fish Physiology and Biochemistry, 2020, 46(6):2243-2256.

DOI

[24]
喻丽娟, 文华, 周书华, 等. 维生素D添加水平对养成中期吉富罗非鱼生长性能、体组成和血清生化指标的影响[J]. 动物营养学报, 2018, 30(3):999-1006.

YU L J, WEN H, ZHOU S H, et al. Effects of vitamin D on growth performance,body composition and serum biochemical indices of genetically improved farmed tilapia (Oreochromis niloticus) in growth mid-stage[J]. Chinese Journal of Animal Nutrition, 2018, 30(3):999-1006. (in Chinese)

[25]
刘树彬. 维生素D3对中华绒螯蟹生长、蜕壳及免疫力的调控作用[D]. 博士学位论文. 上海: 华东师范大学, 2022.

LIU S B. Regulation of vitamin D3 on growth,molting and immunity of Chinese mitten crabs (Eriocheir sinensis)[D]. Ph.D.Thesis. Shanghai: East China Normal University, 2022. (in Chinese)

[26]
LI X G, XU Z Q, ZHOU G, et al. Molecular characterization and expression analysis of five chitinases associated with molting in the Chinese mitten crab,Eriocheir sinensis[J]. Comparative Biochemistry and Physiology B:Biochemistry and Molecular Biology, 2015, 187:110-120.

DOI

[27]
RAZZAQUE M S. Can adverse effects of excessive vitamin D supplementation occur without developing hypervitaminosis D?[J]. Journal of Steroid Biochemistry and Molecular Biology, 2018, 180:81-86.

DOI PMID

[28]
MYKLES D L. Signaling pathways that regulate the crustacean molting gland[J]. Frontiers in Endocrinology, 2021, 12:674711.

[29]
JIAO F, ZHANG L, LIMBU S M, et al. A comparison of digestive strategies for fishes with different feeding habits:digestive enzyme activities,intestinal morphology,and gut microbiota[J]. Ecology and Evolution, 2023, 13(9):e10499.

DOI

[30]
YANG Z L, HAO J J, LIU Y F, et al. Histological morphology and gene expression in the digestive system of Procambarus clarkii[J]. Aquaculture and Fisheries, 2025, 10(4):596-607.

DOI

[31]
XU Y, LI Y Q, XUE M Y, et al. Effects of dietary Saccharomyces cerevisiae YFI-SC2 on the growth performance,intestinal morphology,immune parameters,intestinal microbiota,and disease resistance of crayfish (Procambarus clarkia)[J]. Animals, 2021, 11(7):1963.

DOI

[32]
SHAO R, LIU J Y, LAN Y W, et al. Vitamin D impacts on the intestinal health,immune status and metabolism in turbot (Scophthalmus maximus L.)[J]. British Journal of Nutrition, 2022, 128(11):2083-2096.

DOI

[33]
KO J, CHO J, PETROV M S. Low serum amylase,lipase,and trypsin as biomarkers of metabolic disorders:a systematic review and meta-analysis[J]. Diabetes Research and Clinical Practice, 2020, 159:107974.

[34]
FLEET J C. Vitamin D-mediated regulation of intestinal calcium absorption[J]. Nutrients, 2022, 14(16):3351.

DOI

[35]
FLEET J C. The role of vitamin D in the endocrinology controlling calcium homeostasis[J]. Molecular and Cellular Endocrinology, 2017, 453:36-45.

DOI PMID

[36]
PATNAIK B B, BALIARSINGH S, SARKAR A, et al. The role of pattern recognition receptors in crustacean innate immunity[J]. Reviews in Aquaculture, 2024, 16(1):190-233.

DOI

[37]
HAPSARI F, SUPRAYUDI M A, AKIYAMA D M, et al. Decoding stress responses in farmed crustaceans:comparative insights for sustainable aquaculture management[J]. Biology, 2025, 14(8):920.

DOI

[38]
GÖRING H. Vitamin D in nature:a product of synthesis and/or degradation of cell membrane components[J]. Biochemistry(Moscow), 2018, 83(11):1350-1357.

[39]
LIU S B, WANG X D, BU X Y, et al. Influences of dietary vitamin D3 on growth,antioxidant capacity,immunity and molting of Chinese mitten crab (Eriocheir sinensis) larvae[J]. Journal of Steroid Biochemistry and Molecular Biology, 2021, 210:105862.

[40]
BIKLE D D. Vitamin D regulation of immune function[J]. Current Osteoporosis Reports, 2011, 20(3):186-193.

DOI

[41]
MEYER V, SACCONE D S, TUGIZIMANA F, et al. Methylation of the vitamin D receptor (VDR) gene,together with genetic variation,race,and environment influence the signaling efficacy of the Toll-like receptor 2/1-VDR pathway[J]. Frontiers in Immunology, 2017, 8:1048.

[42]
METHATHAM T, BOONCHUEN P, JAREE P, et al. Antiviral action of the antimicrobial peptide ALFPm3 from Penaeus monodon against white spot syndrome virus[J]. Developmental & Comparative Immunology, 2017, 69:23-32.

[43]
QIN X, WANG X. Role of vitamin D receptor in the regulation of CYP3A gene expression[J]. Acta Pharmaceutica Sinica B, 2019, 9(6):1087-1098.

DOI

[44]
TASSANAKAJON A, RIMPHANITCHAYAKIT V, VISETNAN S, et al. Shrimp humoral responses against pathogens:antimicrobial peptides and melanization[J]. Developmental & Comparative Immunology, 2018, 80:81-93.

Outlines

/