RESEARCH PAPER

Mechanism of Allium polyrhizum Turcz. ex Regel Flavonoids in Alleviating Deoxynivalenol-Induced Proventriculitis in Chicken Embryos via Pyroptosis Inhibition

  • ZHAO Peng , 1 ,
  • GAO Jian 1 ,
  • ZHENG Hao 2 ,
  • ZHAO Caiquan 1 ,
  • BAI Lige 1 ,
  • LIU Jie 1 ,
  • LU Ling 1 ,
  • GAO Xuefeng 1 ,
  • DONG Guicheng 3 ,
  • CHEN Fu , 2, * ,
  • DONG Wenxuan , 2, *
Expand
  • 1 School of Ecological and Environment, Baotou Teachers’ College, Inner Mongolia University of Science and Technology, Baotou 014030, China
  • 2 College of Veterinary Medicine, Qingdao Agricultural University,Qingdao 266109, China
  • 3 College of Life Sciences, Inner Mongolia Agricultural University, Hohhot 010018, China
* CHEN Fu, professor, E-mail: ;
DONG Wenxuan, lecturer, E-mail:

Received date: 2025-06-25

  Online published: 2026-01-13

Abstract

This study investigated the protective effects and underlying mechanisms of Allium polyrhizum Turcz. ex Regel flavonoids (APTF) against deoxynivalenol (DON)-induced proventriculitis in chicken embryos. Healthy Hy-Line brown fertilized eggs at 0 day of embryo age were randomly allocated into four groups as control group (CON group), DON group (10 μg DON per egg), APTF group (150 μg APTF per egg), and DON+APTF group (10 μg DON+150 μg APTF per egg). The model was established via allantoic cavity injection at 9 days of embryo age, with evaluations including glandular stomach histopathology, DON residues, inflammatory factor levels, and pyroptosis-related protein expression at 15 days of embryo age. Key findings demonstrated: 1) DON exposure significantly reduced the organ index of glandular stomach (P<0.05), inducing mucosal epithelial shedding, glandular atrophy, and inflammatory cell infiltration, while APTF intervention markedly alleviated these pathological damages. 2) High performance liquid chromatography-tandem mass spectrometry (HPLC-MS/MS) analysis indicated that APTF did not significantly affect DON residues in glandular stomach (P>0.05), suggesting that its mechanism targets were downstream toxicity pathways. 3) qPCR and Western blot analyses revealed that DON significantly upregulated the mRNA relative expression levels of interleukin-1β (IL-1β), interleukin-6 (IL-6), tumor necrosis factor-α (TNF-α), cyclic GMP-AMP synthase (cGAS), and stimulator of interferon genes (STING) and protein relative expression levels of Toll-like receptor 4 (TLR4), NOD-like receptor thermal protein domain associated protein 3 (NLRP3), cleaved Caspase-3, and gasdermin E (GSDME) (P<0.05), whereas APTF intervention significantly suppressed these molecular changes (P<0.05). Thus, it can be concluded that APTF alleviates DON-induced proventriculitis by inhibiting TLR4/nuclear factor-κB(NF-κB)/NLRP3 inflammatory signaling pathway and Caspase-3/GSDME-dependent pyroptosis pathway, providing a theoretical basis for developing targeted pyroptosis inhibitors as detoxifying agents against mycotoxins.

Cite this article

ZHAO Peng , GAO Jian , ZHENG Hao , ZHAO Caiquan , BAI Lige , LIU Jie , LU Ling , GAO Xuefeng , DONG Guicheng , CHEN Fu , DONG Wenxuan . Mechanism of Allium polyrhizum Turcz. ex Regel Flavonoids in Alleviating Deoxynivalenol-Induced Proventriculitis in Chicken Embryos via Pyroptosis Inhibition[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 621 -633 . DOI: 10.12418/CJAN2026.048

呕吐毒素(deoxynivalenol,DON)是一种由镰刀菌属(Fusarium)产生的B型单端孢霉烯族毒素,是粮食和饲料中污染最为广泛的霉菌毒素之一[1-2]。DON具有多种毒性作用,包括致炎、细胞毒性、免疫抑制以及胃肠道屏障损伤等,严重威胁动物和人类健康[3]。据近年来国内外多项调查及监测报告显示,DON在各类原料及饲料中污染普遍,检出率均严重超标[1,4-5],尤其在黄河流域及周边农业产区污染较为严重[6]。值得注意的是,盐碱地土壤环境更易滋生产毒镰刀菌,导致农作物及饲料原料中DON污染风险显著升高[7-8]。作为畜禽饲料的主要污染物,DON不仅造成生长性能下降、器官损伤等直接经济损失,还可通过食物链蓄积对人类健康构成潜在威胁,对养殖业可持续发展和公共卫生安全带来严峻威胁。
DON可对禽类消化系统造成多层次的毒性损伤,其中腺胃作为毒素进入肠道前的首道代谢屏障,尤其易受侵害。DON通过抑制蛋白质合成、激活促炎信号通路以及诱导细胞死亡等方式,导致腺胃黏膜屏障完整性破坏、消化酶分泌紊乱及局部免疫失调[9-10]。在禽类消化系统中,腺胃不仅承担着机械研磨食糜的关键功能,其分泌的盐酸和胃蛋白酶原更在蛋白质消化、病原微生物杀灭及后续肠道微生态平衡维持中发挥核心作用。此前本课题组研究发现,DON诱导的腺胃炎发生机制涉及氧化应激、炎症反应及细胞焦亡等多条信号通路的复杂调控网络[2,11]。然而,目前关于DON致腺胃炎的关键分子靶点及其精确调控机制的研究仍不够深入,特别是针对禽类腺胃炎特异性分子标志物及有效防控策略的研究仍较有限。禽类腺胃炎的病理变化在养殖实践中表现为采食量下降、料重比升高及均匀度恶化,据行业统计,DON相关性腺胃炎导致的生产损失每年可达数十亿元[12-13]。目前广泛应用的物理吸附剂(如蒙脱石)虽能部分结合毒素,但存在吸附效率有限、可能影响营养素吸收的弊端,且无法逆转已发生的细胞损伤。因此,深入解析DON致腺胃炎的分子机制,并基于DON高污染区域的特色天然植物资源开发靶向干预策略对实现畜禽健康养殖和保障食品安全具有重要意义。
细胞焦亡是一种由炎症小体介导的程序性细胞死亡形式,其特征为细胞膜穿孔、细胞肿胀破裂及大量炎症因子释放。研究表明在胃肠道疾病中,焦亡通过NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎症小体/胱天蛋白酶(Caspase)-1/gasdermin家族成员D(GSDMD)通路和Caspase-3/gasdermin家族成员E(GSDME)通路参与黏膜屏障的损伤过程[14-15]。研究发现,GSDME作为细胞焦亡的关键执行蛋白,在DON暴露条件下可被Caspase-3特异性激活,导致腺胃上皮细胞发生焦亡[11]。DON诱导的氧化应激通过促进活性氧(ROS)积累,激活核因子-κB(NF-κB)和丝裂原活化蛋白激酶(MAPK)信号通路,进而上调NLRP3炎症小体表达,形成“氧化应激-炎症反应-焦亡”的恶性循环[2]。目前研究表明,焦亡在禽类腺胃炎发生发展中起重要作用,但其在DON致鸡胚腺胃炎中的分子机制尚未完全阐明,特别是天然活性成分对其调控作用的研究更为缺乏。
碱韭黄酮(Allium polyrhizum Turcz. ex Regel flavonoids,APTF)是从植物碱韭(Allium polyrhizum Turcz. ex Regel)提取的一类生物活性物质[16-18]。该植物的地理分布区与我国霉菌毒素污染高风险区存在显著的空间耦合性[6]。现有药理学研究初步揭示了其抗氧化和抗炎潜力,发现APTF可通过激活核因子E2相关因子2(Nrf2)/抗氧化反应元件(ARE)信号通路显著提升细胞的抗氧化应激能力[19-20],这为其在霉菌毒素毒性缓解方面的应用提供了分子层面的理论依据。然而,目前关于APTF能否缓解DON诱导的腺胃炎,特别是其是否通过调控细胞焦亡这一关键程序性死亡途径来发挥作用尚不清楚。因此,本试验旨在探究APTF对DON致鸡胚腺胃炎的保护作用,并重点阐明其抑制细胞焦亡的具体分子机制,为开发APTF作为霉菌毒素解毒剂提供理论证据。

1 材料与方法

1.1 试验材料

DON(CAS号:51481-10-8,纯度≥98%)购自青岛普瑞邦生物工程有限公司;APTF由本实验室提取,为深黄色粉末,冻干物中黄酮类化合物含量为70.433%[16,20];石蜡(病理级)购自上海华灵康复器械厂;DON酶联免疫吸附测定(ELISA)定量检测试剂盒(ml103502)购自上海酶联生物科技有限公司;炎症因子包括白细胞介素-1β(IL-1β,ml059835)、白细胞介素-6(IL-6,ml059839)、白细胞介素-10(IL-10,ml059830)、NF-κB(ml002789)和肿瘤坏死因子-α(TNF-α,ml002790)等鸡特异性ELISA试剂盒购自上海酶联生物科技有限公司。
分子生物学试验采用UNlQ-10柱式Trizol总RNA抽提试剂盒[B511321,生工生物工程(上海)股份有限公司]进行RNA提取,采用2X SG Fast qPCR Master Mix(High Rox)(B639273,BBI公司)进行qPCR检测,采用Maxima Reverse Transcriptase(EP0743,Thermo Scientific)进行逆转录。Western blot分析采用以下一抗:NLRP3(19771-1-AP)和GSDME(13075-1-AP),均购自武汉三鹰生物技术有限公司;NF-κB p65(WL01273b)、Caspase-3/剪切型胱天蛋白酶-3(cleaved Caspase-3)(WL02117)和Toll样受体4(TLR4,WL00196),均购自沈阳万类生物科技有限公司。二抗采用辣根过氧化物酶(HRP)标记的山羊抗兔免疫球蛋白G(IgG,BA12163708),购自北京康为世纪生物科技有限公司。蛋白检测采用二喹啉甲酸(BCA)蛋白测定试剂盒(PC0020),购自北京索莱宝科技有限公司;极超敏增强型化学发光(ECL)试剂盒(ED0015)购自山东思科捷生物技术有限公司。所有试验用水均为Milli-Q超纯水,其他常规试剂均为分析纯。

1.2 主要仪器

台式高速冷冻离心机购自Sigma公司,分析天平购自奥豪斯仪器(上海)有限公司;生物显微镜购自重庆奥特光学仪器有限责任公司,石蜡包埋机、切片机和烘片台购自浙江省金华市科迪仪器设备有限公司,酶标仪购自赛默飞世尔(上海)仪器有限公司,电泳仪、转印槽、电泳槽和凝胶成像系统购自美国Bio-Rad公司,PCR扩增仪购自杭州博日科技股份公司,荧光定量PCR仪购自美国ABI公司,超低温冰箱和医用冷藏箱购自海尔集团公司,全自动孵化机购自山东省德州市科裕孵化设备有限公司,压力蒸汽灭菌器购自上海博迅实业有限公司,洁净工作台购自苏州苏洁净化设备有限公司,微量注射器购自上海高鸽工贸有限公司。

1.3 试验设计

本试验方案经内蒙古科技大学包头师范学院实验动物伦理委员会审核批准(批准号:AEWC-BTTC2024-031)。选取0胚龄大小均匀的健康海兰褐种蛋,经75%酒精表面消毒后,置于全自动孵化机(温度37.8 ℃,相对湿度60%)中孵育。9胚龄时,在暗室条件下标记气室与尿囊液分界线,酒精消毒后打孔,使用微量注射器于尿囊腔内无菌注射不同处理溶液。试验设4个组,处理如下:1)对照组(CON组),每蛋注射100 μL生理盐水;2)APTF组,每蛋注射100 μL含150 μg APTF的生理盐水溶液;3)DON组,每蛋注射100 μL含10 μg DON的生理盐水溶液;4)DON+APTF组,每蛋注射100 μL含10 μg DON和150 μg APTF的生理盐水溶液。DON的暴露剂量参考文献[2],每蛋10 μg可稳定诱导鸡胚腺胃炎模型;APTF的干预剂量(每蛋150 μg)是基于本实验室前期的剂量效应研究所确定的最佳保护剂量。注射后以无菌石蜡封闭接种孔,继续孵育至15胚龄。
取样前观察鸡胚存活情况,记录死亡率。存活鸡胚经酒精消毒后,在无菌条件下解剖并获取腺胃,计算脏器指数,脏器指数(g/kg)=脏器鲜重(g)/解剖前活重(kg)。部分腺胃组织立即液氮速冻后保存于-80 ℃超低温冰箱,用于后续qPCR、Western blot及ELISA检测;另一部分腺胃组织置于4%多聚甲醛中固定,用于组织病理学分析。所有操作均在超净工作台下完成,确保无菌条件。

1.4 腺胃组织病理观察

取15胚龄鸡胚腺胃组织,经预冷磷酸盐缓冲液(PBS)冲洗去除残留血液后,置于4%多聚甲醛溶液中固定24 h。固定后的组织依次经梯度乙醇脱水(70%乙醇5 h、80%乙醇过夜、95%乙醇Ⅰ和Ⅱ各2 h、无水乙醇Ⅰ和Ⅱ各2 h),二甲苯透明(酒精-二甲苯混合液10 min、纯二甲苯3 min),石蜡浸透(64 ℃预热的石蜡Ⅰ 2.5 h、石蜡Ⅱ 1.5 h、石蜡Ⅲ 1 h)。采用石蜡包埋机包埋组织,切片机连续切片(厚度4~5 μm),60 ℃烘片过夜。切片经二甲苯脱蜡(Ⅰ和Ⅱ各10 min),梯度乙醇复水(100%乙醇Ⅰ 10 min、100%乙醇Ⅱ 5 min、95%乙醇Ⅰ和Ⅱ各5 min、80%乙醇5 min、70%乙醇5 min),苏木精染色10~30 min,1%盐酸乙醇分化,流水返蓝15 min,0.5%伊红乙醇对比染色1~3 min,再经梯度乙醇脱水(95%乙醇Ⅰ和Ⅱ各5 min、无水乙醇5 min),二甲苯透明(Ⅰ和Ⅱ各5 min),中性树胶封片。采用光学显微镜观察腺胃黏膜组织结构,重点评估黏膜上皮完整性、炎性细胞浸润程度及腺体结构改变等病理学特征,并进行组织学评分。

1.5 透射电镜观察

取15胚龄鸡胚腺胃组织(约1 mm3),立即置于4 ℃预冷的2.5%戊二醛(0.1 mol/L PBS,pH 7.4)中前固定4 h。固定后的组织经0.1 mol/L PBS(pH 7.4)漂洗3次(每次15 min),再以1%锇酸(0.1 mol/L PBS,pH 7.4)后固定2 h。依次经梯度乙醇脱水(50%、70%、80%、90%乙醇各15 min,100%乙醇3次各20 min),环氧丙烷过渡(2次各15 min),环氧树脂Epon812渗透(环氧丙烷∶树脂=1∶1,2 h;纯树脂,过夜)。包埋后60 ℃聚合48 h。超薄切片机切取70 nm超薄切片,醋酸铀-柠檬酸铅双染色(醋酸铀饱和酒精溶液染色30 min,柠檬酸铅溶液染色15 min)。采用JEM-1400Flash型透射电子显微镜(日本电子株式会社)在80 kV加速电压下观察并采集图像,重点观察腺胃上皮细胞膜完整性、线粒体形态、内质网结构等亚细胞器变化,以及焦亡特征性形态学改变(如细胞膜孔洞形成、细胞肿胀、胞质内容物释放等)。

1.6 尿囊液和腺胃炎症因子含量测定

取15胚龄鸡胚腺胃组织,经预冷PBS(0.01 mol/L,pH 7.4)冲洗后称重(约0.1 g),冰浴条件下加入0.1 mL PBS进行机械匀浆处理,补加0.8 mL PBS制成10%组织匀浆液,5 000×g离心10 min(4 ℃)后收集上清液待测。采用双抗体夹心ELISA法检测炎症因子含量:将试剂盒[IL-1β、IL-6、IL-10、TNF-α、肿瘤坏死因子-β(TNF-β)、NF-κB]室温平衡30 min后,设置标准品梯度(50 μL/孔)和样本孔(50 μL/孔),各设3个复孔;每孔加入HRP标记检测抗体(100 μL),37 ℃孵育60 min;洗板5次(洗涤液350 μL/孔,每次静置1 min)后,加入四甲基联苯胺(TMB)底物(A、B液各50 μL)避光显色15 min(37 ℃),终止反应后15 min内于酶标仪测定450 nm波长吸光度值。

1.7 腺胃炎症和焦亡通路相关基因表达测定

采用RNA抽提试剂盒提取腺胃组织总RNA,测定浓度及纯度(A260/A280值为1.8~2.0)后;取1 μg RNA使用逆转录试剂盒录合成cDNA。qPCR反应体系(20 μL)包含:2X SG Fast qPCR Master Mix(High Rox)10.0 μL、正向和反向引物(10 μmol/L)各0.8 μL、cDNA模板2.0 μL、RNase-free ddH2O 6.4 μL。反应程序:95 ℃预变性30 s;95 ℃ 5 s,60 ℃ 30 s,40个循环;根据熔解曲线分析引物特异性。检测指标包括:炎症因子(IL-1βIL-6、TNF-α)、焦亡通路关键基因[环磷酸鸟苷-磷酸腺苷合成酶(cGAS)、干扰素基因刺激因子(STING)]及内参基因β-肌动蛋白(β-actin)。采用2-ΔΔCt法计算目的基因mRNA相对表达量,所有引物(序列见表1)经Primer Premier 5.0设计,由生工生物工程(上海)股份有限公司合成,扩增效率均验证为90%~110%。每个样本设3个重复,试验全程设置无模板对照(NTC)和质量控制。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
白细胞介素-1β
IL-1β
F:TGTCGTGTGTGATGAGCGG
R:CAGGCGGTAGAAGATGAAGC
107
白细胞介素-6
IL-6
F: ACCTTCCCACCAATATCCCA
R: GCCTCATCCGCACTTCCA
102
肿瘤坏死因子-α
TNF-α
F: TGAGGCATTTGGAAGCAGC
R:CAGGGTAGGGGTGAGGATAGTT
205
环磷酸鸟苷-磷酸腺苷合成酶
cGAS
F:AATGCGAAGATCCTGTTGGTCTC
R:GCTCCTCCTAATTCAGTATGCCTAG
158
干扰素基因刺激因子
STING
F:TCGGCAGTGGAGGTGTCAG
R:CTTCAGGCGTGGCAGAACTAC
111
β-肌动蛋白
β-actin
F:TGATATTGCTGCGCTCGTTG
R:ATACCTCTTTTGCTCTGGGCTT
183

1.8 腺胃炎症和焦亡通路相关蛋白表达测定

取100 mg腺胃组织加入1 mL放射免疫沉淀分析(RIPA)裂解液[含1%苯甲基磺酰氟(PMSF)和1%蛋白酶抑制剂],冰上匀浆后4 ℃静置30 min,12 000×g离心15 min(4 ℃)收集上清液。采用BCA法测定蛋白浓度,调整样品浓度为4 μg/μL。取40 μg蛋白样品经10%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离后,采用湿转法转印至聚偏二氟乙烯(PVDF)膜(300 mA,90 min)。采用5%脱脂牛奶室温封闭2 h后,分别与一抗(TLR4 1∶1 000、NLRP3 1∶1 000、NF-κB 1∶1 000、GSDME 1∶1 000、cleaved Caspase-3 1∶1 000、β-肌动蛋白 1∶5 000)4 ℃孵育过夜。采用含吐温-20(Tween-20)的Tris缓冲盐水(TBST)漂洗3次(每次10 min)后,与HRP标记二抗(1∶5 000)室温孵育1 h。ECL显影后,采用Tanon 1600系统扫描,并用Image J进行分析,以β-肌动蛋白为内参计算目标蛋白相对表达量。试验重复3次以确保结果可靠性。

1.9 数据统计分析

采用SPSS 22.0软件对试验数据进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,P<0.05为差异显著,结果数据以平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 DON和APTF对鸡胚腺胃脏器指数的影响

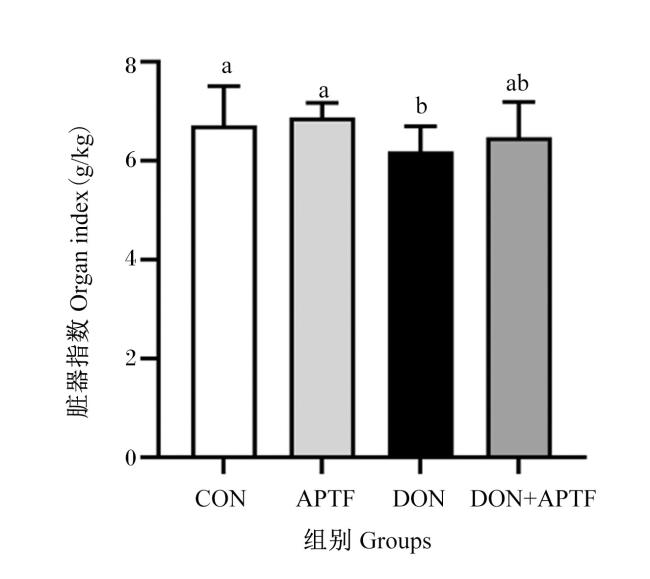
图1所示,与CON组相比,DON组鸡胚腺胃脏器指数显著降低(P<0.05),表明DON暴露导致腺胃发育受阻;而与DON组相比,DON+APTF组腺胃脏器指数呈升高趋势,但无显著差异(P>0.05);此外,APTF组腺胃脏器指数与CON组相比无显著差异(P>0.05),表明APTF本身对鸡胚腺胃发育无不良影响。
图1 DON和APTF对鸡胚腺胃脏器指数的影响

数据柱形标注不同字母表示差异显著(P<0.05),相同字母表示差异不显著(P>0.05)。图3图5同。

Fig.1 Effects of DON and APTF on organ index of glandular stomach in chicken embryos

Data columns with different letters indicated significant difference (P<0.05), while with the same letter indicated no significant difference (P>0.05). The same as Fig.3 to Fig.5.

2.2 DON和APTF对鸡胚腺胃组织病理结构的影响

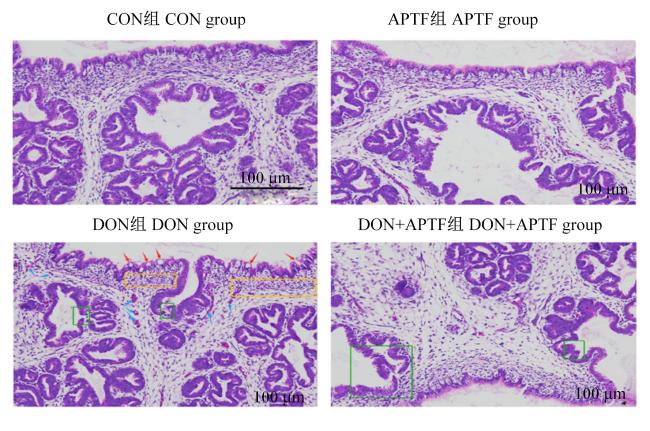
图2所示,鸡胚腺胃组织苏木精-伊红(HE)染色结果显示,CON组腺胃黏膜结构完整,排列整齐,固有层腺体形态规则,未见明显炎性细胞浸润。DON组呈现典型腺胃炎病理特征,黏膜上皮细胞排列紊乱,部分区域出现上皮脱落;固有层腺体萎缩变形,间质可见大量淋巴细胞和中性粒细胞浸润,局部区域出现黏膜下层水肿。与DON组相比,DON+APTF组腺胃黏膜损伤显著改善,结构基本完整,腺体萎缩程度减轻,炎性细胞浸润减少。APTF组与CON组腺胃组织结构无显著差异。
图2 DON和APTF对鸡胚腺胃组织病理结构的影响

腺胃组织苏木精-伊红染色图。绿框:腺小叶上皮细胞排列紊乱,部分区域出现上皮空泡化和脱落;黄框:间质可见大量淋巴细胞和粒细胞浸润;红色箭头:黏膜上皮细胞空泡化严重;蓝色箭头:局部血管扩张明显。

Fig.2 Effects of DON and APTF on histopathological structure of glandular stomach in chicken embryos (40×)

Hematoxylin-eosin staining images of glandular stomach tissues. Green box: disorganized arrangement of glandular lobule epithelial cells, with vacuolization and exfoliation in some areas; yellow box: interstitial infiltration of numerous lymphocytes and granulocytes was observed; red arrow: severe vacuolization of mucosal epithelial cells; blue arrow: marked local vascular dilation.

2.3 鸡胚腺胃DON含量

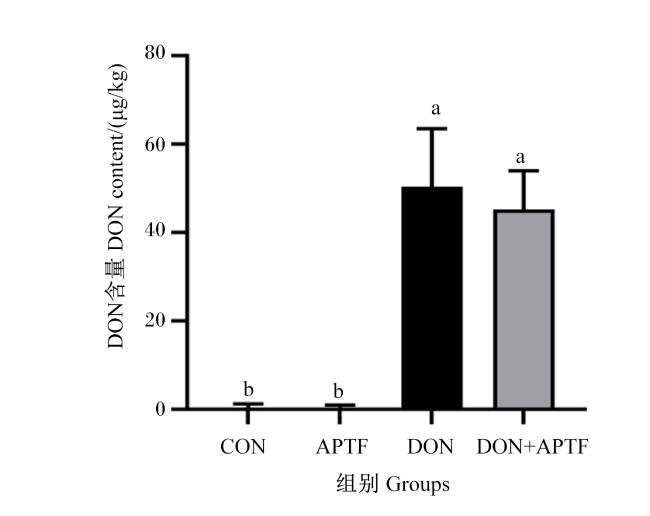
本试验采用高效液相色谱-串联质谱(HPLC-MS/MS)法检测各组鸡胚腺胃组织中DON残留量,结果如图3所示。CON组和APTF组腺胃均未检出DON[<检测限(LOD)0.05 μg/kg]。与CON组相比,DON组腺胃DON含量显著升高(P<0.05),证实DON成功通过尿囊腔注射途径进入鸡胚并富集于靶器官中。值得注意的是,DON+APTF组腺胃DON含量与DON组相比无显著差异(P>0.05),提示APTF可能通过下游信号通路(如焦亡抑制)拮抗DON毒性,而非影响DON的组织分布。
图3 鸡胚腺胃DON含量

Fig.3 DON content in glandular stomach in chicken embryos

2.4 DON和APTF对鸡胚尿囊液炎症因子含量的影响

表2可知,与CON组相比,DON组鸡胚尿囊液促炎因子IL-6、IL-1β、TNF-α和TNF-β含量均显著升高(P<0.05),同时抗炎因子IL-10含量也出现代偿性显著升高(P<0.05),表明DON诱导了典型的炎症反应失衡。与DON组相比,DON+APTF组上述炎症因子含量均显著降低(P<0.05),其中IL-1β含量降低较为明显,这与焦亡通路中Caspase家族对IL-1β的活化机制相吻合。此外,与CON组相比,APTF组鸡胚尿囊液IL-1β含量显著降低(P<0.05),其他各炎症因子含量均无显著差异(P>0.05),这再次证实APTF的安全性和靶向调节特性。
表2 DON和APTF对鸡胚尿囊液炎症因子含量的影响

Table 2 Effects of DON and APTF on inflammatory factor contents in allantoic fluid in chicken embryos pg/mL

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON APTF DON DON+APTF
白细胞介素-1β IL-1β 107.71b 100.13c 130.50a 109.57b 2.030 <0.001
白细胞介素-6 IL-6 28.78c 23.70c 39.13a 30.02b 1.123 <0.001
白细胞介素-10 IL-10 38.43c 39.84c 59.92a 50.08b 1.553 <0.001
肿瘤坏死因子-α TNF-α 58.77c 59.36c 90.05a 78.27b 2.428 <0.001
肿瘤坏死因子-β TNF-β 178.95c 178.12c 260.51a 233.27b 6.127 <0.001

同行数据肩标不同字母表示差异显著(P<0.05),相同字母表示差异不显著(P>0.05)。表3同。

Values in the same row with different letter superscripts indicated significant difference (P<0.05), while with the same letter superscripts indicated on significant difference (P>0.05). The same as Table 3.

2.5 DON和APTF对鸡胚腺胃炎症因子含量的影响

从鸡胚尿囊液炎症因子含量的结果来看,DON可能通过激活焦亡通路促进腺胃炎症反应,因此本试验进一步检测了腺胃组织中焦亡相关炎症因子(IL-1β、IL-6、TNF-α)及上游调控因子NF-κB含量(表3)。结果表明,与CON组相比,DON组鸡胚腺胃IL-1β、IL-6和TNF-α含量均显著升高(P<0.05),同时腺胃NF-κB含量显著升高(P<0.05)。与DON组相比,DON+APTF组腺胃各炎症因子含量均显著降低(P<0.05)。此外,APTF组腺胃各炎症因子含量与CON组相比均无显著差异(P>0.05)。
表3 DON和APTF对鸡胚腺胃炎症因子含量的影响

Table 3 Effects of DON and APTF on inflammatory factor contents in glandular stomach in chicken embryos pg/mL

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON APTF DON DON+APTF
白细胞介素-1β IL-1β 81.09c 80.80c 177.14a 124.06b 6.775 <0.001
白细胞介素-6 IL-6 7.57c 7.42c 15.94a 11.50b 0.651 <0.001
肿瘤坏死因子-α TNF-α 10.86c 9.91c 20.45a 16.08b 0.801 <0.001
核因子-κB NF-κB 393.03c 394.79c 869.87a 484.15b 33.759 <0.001

2.6 DON和APTF对鸡胚腺胃炎症和焦亡通路相关基因表达的影响

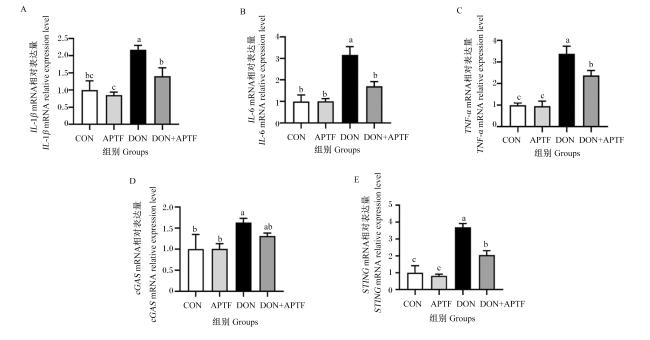
图4所示,qPCR检测结果显示,与CON组相比,DON组鸡胚腺胃IL-1βIL-6、TNF-αcGASSTING mRNA相对表达量均显著升高(P<0.05)。与DON组相比,DON+APTF组腺胃IL-1βIL-6、TNF-αSTING mRNA相对表达量均显著降低(P<0.05),腺胃cGAS mRNA相对表达量有所降低(P>0.05),表明APTF可有效抑制DON诱导的炎症-焦亡通路相关基因mRNA相对表达量的上调。此外,与CON组相比,APTF组腺胃各炎症和焦亡通路相关基因mRNA相对表达量无显著差异(P>0.05),证实APTF的调控作用具有特异性。
图4 DON和APTF对鸡胚腺胃炎症和焦亡通路相关基因表达的影响

Fig.4 Effects of DON and APTF on expression of genes related to inflammatory and pyroptosis pathways in glandular stomach in chicken embryos

2.7 DON和APTF对鸡胚腺胃炎症和焦亡通路相关蛋白表达的影响

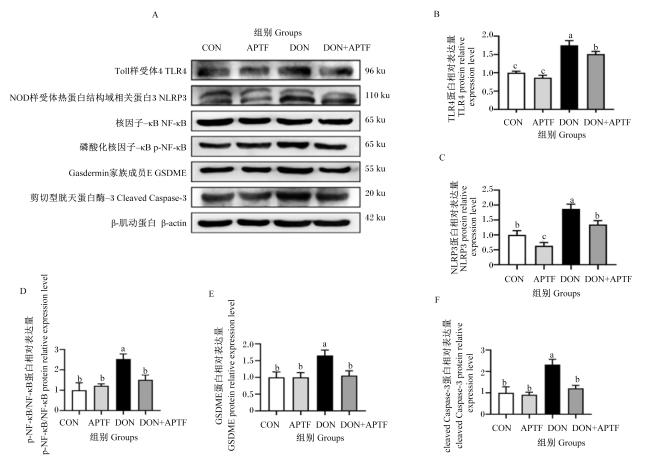
图5所示,Western blot检测结果显示,与CON组相比,DON组鸡胚腺胃TLR4、NLRP3、cleaved Caspase-3、磷酸化核因子-κB(p-NF-κB)/NF-κB和GSDME蛋白相对表达量均显著上调(P<0.05),表明DON成功激活了TLR4/NF-κB/NLRP3炎症小体通路并诱导GSDME依赖性焦亡。与DON组相比,DON+APTF组腺胃上述各蛋白相对表达量均显著下调(P<0.05),其中GSDME相对表达量下调尤为明显,提示APTF可能通过阻断TLR4信号转导进而抑制下游焦亡执行蛋白的活化。此外,与CON组相比,APTF组腺胃NLRP3蛋白相对表达量显著下调(P<0.05),其他各炎症和焦亡通路相关蛋白相对表达量无显著差异(P>0.05),证实其调控作用具有靶向性。
图5 DON和APTF对鸡胚腺胃炎症和焦亡通路相关蛋白表达的影响

Fig.5 Effects of DON and APTF on expression of proteins related to inflammatory and pyroptosis pathways in glandular stomach in chicken embryos

3 讨论

DON是一种由镰刀菌产生的B型单端孢霉烯族霉菌毒素,广泛污染谷物及其副产品,对畜禽健康构成严重威胁。在禽类中,DON可导致生长性能下降、免疫抑制及消化系统损伤,其中腺胃作为禽类消化系统的重要器官,对DON尤为敏感。近年来,关于DON及其他霉菌毒素的毒性机制研究多集中于肠道屏障功能及肝脏代谢[21-22],而对禽类腺胃损伤的关注较少,尤其是DON诱导的腺胃炎及其分子机制尚未完全阐明。碱韭作为我国北方地区蒙古族传统医药和饮食文化中的重要植物,其自然分布区与黄河流域及盐碱地等霉菌毒素高污染区高度重合,具有显著的生态适应性和药用开发潜力。APTF作为其主要活性成分,已被证实具有抗炎、抗氧化及细胞保护作用[16,20]。本研究以鸡胚为模型,探究APTF对DON诱导的腺胃炎的保护作用及其潜在机制,为开发区域性天然解毒剂提供理论依据。
鸡腺胃作为消化系统的关键器官,通过分泌胃酸和消化酶实现化学消化,同时依靠机械蠕动完成物理消化,其功能的正常运作对机体营养吸收和代谢平衡具有决定性作用[23]。研究表明,DON暴露可显著破坏腺胃黏膜完整性,通过激活TLR4/NF-κB信号通路诱发局部炎症反应,抑制消化酶分泌,最终导致消化功能障碍和全身代谢紊乱[2,11]。本研究结果显示,DON暴露导致鸡胚腺胃脏器指数显著降低,组织病理学观察显示黏膜上皮脱落、腺体萎缩等典型损伤特征,同时伴随炎症因子和焦亡相关蛋白表达上调。研究发现,APTF作为传统蒙药的重要活性成分,其化学成分主要包括槲皮素、山奈酚等黄酮类化合物。研究证实,与之类似的植物提取物普遍具有显著的抗氧化和抗炎特性,能够通过调节Nrf2/血红素氧合酶-1(HO-1)等信号通路减轻氧化应激损伤,并通过抑制NF-κB信号转导降低炎症反应[24-25]。值得注意的是,与本研究发现一致,黄酮类化合物在畜禽霉菌毒素中毒模型中展现出明确的保护作用,如Zhang等[26]报道,黄芩苷可缓解黄曲霉毒素B1诱导的肝脏损伤;王定发[27]证实,大豆异黄酮能改善玉米赤霉烯酮导致的母猪生殖器官发育和肝脏损伤。本研究进一步证实,APTF干预可显著减轻DON暴露引起的腺胃毒性,表现为黏膜屏障功能改善、炎症因子表达下调以及焦亡相关蛋白活化抑制。
检测靶器官DON含量在霉菌毒素中毒机制研究中具有关键意义,其不仅能准确反映毒素的生物利用度,还可为解毒剂的作用位点提供直接证据。本研究通过HPLC-MS/MS法检测发现,DON组鸡胚腺胃组织中DON含量显著升高,这一结果不仅证实DON可通过尿囊腔注射途径进入鸡胚循环并在靶器官富集,更建立了剂量-效应关系的基础。值得注意的是,DON+APTF组与DON组相比腺胃DON含量无显著差异,这一发现具有三重毒理学价值:首先,从毒物动力学角度排除了APTF通过改变DON吸收、分布或排泄发挥保护作用的可能性;其次,结合组织病理学改善和炎症因子下调的结果,确证其作用靶点为DON下游毒性通路;再者,与黄酮类化合物特有的膜稳定作用[28]的文献报道形成机制互补。本研究进一步揭示APTF通过特异性抑制GSDME介导的焦亡通路(而非影响DON组织分布)来拮抗毒性。
炎症反应作为机体重要的防御机制,其过度激活可导致组织损伤和功能障碍,这在DON毒性中表现得尤为突出。本研究证实,DON暴露显著激活了鸡胚腺胃NF-κB信号通路,促进IL-1β、IL-6等促炎因子的过量释放,而APTF干预可有效逆转这一炎症级联反应。这一发现与多种植物提取物的研究结果相印证:如水飞蓟素通过抑制NLRP3炎症小体减轻肝脏损伤[29],黄芩提取物调控改善蛋鸡输卵管炎[30],姜黄素通过调节肠道菌群缓解结肠炎[31]。特别值得关注的是,在消化系统保护方面,植物黄酮类成分展现出显著优势[32-34]。本研究发现,APTF通过抑制NF-κB核转位、减少炎症小体组装、下调炎症因子释放缓解DON诱导的腺胃炎症,其作用机制与其他植物黄酮类成分在消化系统的保护效应类似,这凸显了民族医药资源在开发消化道炎症调节剂方面的独特价值。
焦亡作为一种炎性程序性细胞死亡,主要由gasdermin家族蛋白介导,其中GSDMD被广泛认为是经典焦亡通路的效应分子,通过Caspase-1依赖性切割形成膜孔道[35]。而近年研究发现,GSDME作为gasdermin家族另一重要成员,可被Caspase-3特异性激活,在化疗药物及毒素诱导的细胞死亡中发挥关键作用[36]。本研究证实,DON可显著激活鸡胚腺胃中GSDME依赖性焦亡通路,表现为Caspase-3介导的GSDME蛋白相对表达量上调,这一发现为理解DON的消化道毒性提供了新的机制视角。研究结果显示,DON通过TLR4/NF-κB/NLRP3/Caspase-3信号级联反应触发GSDME切割,而APTF干预可显著抑制该通路中关键蛋白(NLRP3、Caspase-3、GSDME)的活化。这一保护效应与多种植物黄酮的研究结果相呼应。例如:槲皮素通过阻断沉默信息调节因子1(SIRT1)/信号转导与转录激活因子3(STAT3)/GSDME通路减轻肾脏足细胞焦亡[37],沙棘黄酮抑制GSDMD介导的胃黏膜上皮细胞焦亡[38],木犀草素通过调节NLRP3/Caspase-1/GSDMD通路改善脂多糖(LPS)/ATP诱导的细胞焦亡[39],这与本研究发现的APTF的作用机制高度一致。值得注意的是,本研究中APTF对上游枢纽NLRP3的显著抑制,理论上可能同时影响下游多条信号通路。由于本研究未检测GSDMD的活化及其上游蛋白酶(如Caspase-1及Caspase-4/5/11等同源物)的表达与切割情况,因此目前尚不能完全排除APTF对GSDMD焦亡通路的潜在抑制作用。综合本研究结果可以确认,APTF通过特异性靶向Caspase-3/GSDME焦亡通路来阻断DON诱导的“炎症-焦亡”恶性循环,从而发挥腺胃保护作用。

4 结论

DON通过激活TLR4/NF-κB/NLRP3炎症信号通路和Caspase-3/GSDME依赖性焦亡途径,诱导鸡胚腺胃组织损伤。APTF可显著缓解DON毒性,其保护机制涉及多靶点调控,包括抑制炎症信号通路活化、阻断焦亡进程及下调促炎因子表达等。
[1]
SUMARAH M W. The deoxynivalenol challenge[J]. Journal of Agricultural and Food Chemistry, 2022, 70(31):9619-9624.

DOI PMID

[2]
HOU L L, YUAN H, LIU Y, et al. Effect of deoxynivalenol on inflammatory injury on the glandular stomach in chick embryos[J]. Poultry Science, 2023, 102(11):102870.

DOI

[3]
武爱波, 郭立佳, 杨文杰, 等. 呕吐毒素对动物危害的研究进展及解决策略分析[J]. 饲料工业, 2025, 46(7):1-8.

WU A B, GUO L J, YANG W J, et al. Research advances for hazardous of deoxynivalenol to animals and related control strategies[J]. Feed Industry, 2025, 46(7):1-8. (in Chinese)

[4]
GALLO A, CATELLANI A, GHILARDELLI F, et al. Review:strategies and technologies in preventing regulated and emerging mycotoxin co-contamination in forage for safeguarding ruminant health[J]. Animal, 2024, 18(S2):101280.

DOI

[5]
雷元培, 周建川, 郑文革, 等. 2023年中国饲料和原料中霉菌毒素污染调查报告[J/OL]. 饲料工业, 2025:1-10(2025-04-14)[2025-05-10]. https://link.cnki.net/urlid/21.1169.S.20250414.1200.013.html.

LEI Y P, ZHOU J C, ZHENG W G, et al. A survey report on mycotoxin contamination of Chinese raw materialsand feed in 2023[J/OL]. Feed Industry, 2025:1-10(2025-04-14)[2025-05-10]. https://link.cnki.net/urlid/21.1169.S.20250414.1200.013.html. (in Chinese)

[6]
甄阳光. 我国主要饲料原料及产品中镰刀菌毒素污染及分布规律的研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2009.

ZHEN Y G. The contamination and distribution rule of fusarium toxins in main feedstuffs and products in China[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2009. (in Chinese)

[7]
TIWARI R K, LAL M K, KUMAR R, et al. Salt stress influences the proliferation of Fusarium solani and enhances the severity of wilt disease in potato[J]. Heliyon, 2024, 10(4):e26718.

DOI

[8]
HELLMAN E M, TURINI T, SWETT C L. Impacts of increasing soil salinity on genetic resistance (I-3 gene)-based management of fusarium wilt (Fusarium oxysporum f.sp. lycopercisi Race 3) in California processing tomatoes[J]. Phytopathology, 2024, 114(10):2252-2261.

DOI

[9]
ADUGNA C, WANG K, DU J, et al. Deoxynivalenol mycotoxin dietary exposure on broiler performance and small intestine health:a comprehensive Meta-analysis[J]. Poultry Science, 2024, 103(12):104412.

DOI

[10]
PARASKEUAS V, GRIELA E, BOUZIOTIS D, et al. Effects of deoxynivalenol and fumonisins on broiler gut cytoprotective capacity[J]. Toxins, 2021, 13(10):729.

DOI

[11]
CHEN F, YANG G M, QIU H L, et al. Deoxynivalenol-induced pyroptosis and autophagy inhibition collectively promote inflammatory injury in the glandular stomach of chicken embryos[J]. Poultry Science, 2025, 104(5):105052.

DOI

[12]
尚小雷, 聂婧, 丁雪莹. 肉鸡腺胃炎研究进展[J]. 山东畜牧兽医, 2022, 43(11):79-81.

SHANG X L, NIE J, DING X Y. Research progress on broiler proventriculitis[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2022, 43(11):79-81. (in Chinese)

[13]
李冰, 刘光通. 霉菌毒素对肉鸡的危害及防治[J]. 山东畜牧兽医, 2012, 33(3):76.

LI B, LIU G T. The hazards of mycotoxins to broilers and their prevention and control[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2012, 33(3):76. (in Chinese)

[14]
PRIVITERA G, RANA N, ARMUZZI A, et al. The gasdermin protein family:emerging roles in gastrointestinal health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2023, 20(6):366-387.

[15]
洪坤巧, 邱虎, 余保平. 焦亡在常见消化道疾病中的机制研究[J]. 医学综述, 2020, 26(5):878-882,887.

HONG K Q, QIU H, YU B P. Mechanism of pyroptosis in common digestive tract diseases[J]. Medical Recapitulate, 2020, 26(5):878-882,887. (in Chinese)

[16]
高雪峰, 高健, 门中华, 等. 超声提取碱韭总黄酮及其抗氧化活性研究[J]. 食品与发酵工业, 2024, 50(3):197-206.

DOI

GAO X F, GAO J, MEN Z H, et al. Study on extraction of total flavonoids from Allium polyrhizum Turcz.ex Regel by ultrasonic-assisted extraction method and antioxidant activity[J]. Food and Fermentation Industries, 2024, 50(3):197-206. (in Chinese)

[17]
赵鹏, 秦永林, 门中华, 等. 内蒙古野生碱韭食用花中营养成分分析[J]. 现代食品科技, 2016, 32(12):292-297.

ZHAO P, QIN Y L, MEN Z H, et al. Analyses of nutritional ingredients in edible flowers of wild Allium polyrhizum Turcz.ex Regel from Inner Mongolia[J]. Modern Food Science and Technology, 2016, 32(12):292-297. (in Chinese)

[18]
高雪峰, 高健, 杨昱萍, 等. 碱韭总黄酮含量测定方法优选[J]. 食品安全导刊, 2023(21):70-75,79.

GAO X F, GAO J, YANG Y P, et al. Optimization of determination method of total flavonoids content in Allium polyrhizum Turcz.ex Regel[J]. China Food Safety Magazine, 2023(21):70-75,79. (in Chinese)

[19]
奥云额尔敦. 内蒙古草原耐旱植物碱韭和尖叶变蒿降血脂及降血糖活性研究[D]. 博士学位论文. 呼和浩特: 内蒙古大学, 2023.

UYUNERDEN. Study on hypolipidemic and hypoglycemic activities of drought-tolerant plants Allium polyrhizum and Artemisia commutata Bess in Inner Mongolia[D]. Ph.D. Thesis. Hohhot: Inner Mongolia University, 2023.

[20]
赵彩权, 赵雅茹, 赵鹏, 等. 碱韭总黄酮通过调控细胞程序性死亡发挥抗肿瘤作用的机制研究[J]. 中国细胞生物学学报, 2024, 46(7):1387-1398.

ZHAO C Q, ZHAO Y R, ZHAO P, et al. The mechanism of total flavonoids from Allium polyrhizum exerting anti-tumor effects by regulating programmed cell death[J]. Chinese Journal of Cell Biology, 2024, 46(7):1387-1398. (in Chinese)

[21]
PINTON P, OSWALD I P. Effect of deoxynivalenol and other type B trichothecenes on the intestine:a review[J]. Toxins, 2014, 6(5):1615-1643.

DOI

[22]
YANG W Y, HUANG L B, WANG P W, et al. The effect of low and high dose deoxynivalenol on intestinal morphology,distribution,and expression of inflammatory cytokines of weaning rabbits[J]. Toxins, 2019, 11(8):473.

DOI

[23]
MU M Y, ZHAO H J, WANG Y, et al. Arsenic trioxide or/and copper sulfate co-exposure induce glandular stomach of chicken injury via destruction of the mitochondrial dynamics and activation of apoptosis as well as autophagy[J]. Ecotoxicology and Environmental Safety, 2019, 185:109678.

[24]
SHEN N, WANG T F, GAN Q, et al. Plant flavonoids:classification, distribution,biosynthesis,and antioxidant activity[J]. Food Chemistry, 2022, 383:132531.

[25]
AL-KHAYRI J M, SAHANA G R, NAGELLA P, et al. Flavonoids as potential anti-inflammatory molecules:a review[J]. Molecules, 2022, 27(9):2901.

DOI

[26]
ZHANG H J, LUO J Z, LAN C L, et al. Baicalin protects against hepatocyte injury caused by aflatoxin B1 via the TP53-related ferroptosis pathway[J]. Ecotoxicology and Environmental Safety, 2024, 281:116661.

[27]
王定发. 玉米赤霉烯酮联合大豆异黄酮对青年母猪生殖器官发育、肝脏损伤和组织玉米赤霉烯酮残留的影响及其机制研究[D]. 博士学位论文. 武汉: 华中农业大学, 2011.

WANG D F. Combination effect of zearalenone and soybean isoflavone on the development of reproductive organs,liver damage and tissues residue of zearalenone in prepubertal gilts[D]. Ph.D.Thesis. Wuhan: Huazhong Agricultural University, 2011. (in Chinese)

[28]
TARAHOVSKY Y S, MUZAFAROV E N, KIM Y A. Rafts making and rafts braking:how plant flavonoids may control membrane heterogeneity[J]. Molecular and Cellular Biochemistry, 2008, 314(1/2):65-71.

DOI

[29]
胡俊, 饶紫兰, 陈江木, 等. 水飞蓟素通过调控Nrf2抗氧化通路抑制NLRP3炎症小体改善非酒精性脂肪性肝病[J]. 中国药理学通报, 2020, 36(7):971-977.

HU J, RAO Z L, CHEN J M, et al. Silymarin inhibits NLRP3 inflammasome to improve nonalcoholic fatty liver disease via regulating Nrf2 antioxidant pathway[J]. Chinese Pharmacological Bulletin, 2020, 36(7):971-977. (in Chinese)

[30]
陈丽红, 朱秀高, 魏晴, 等. 黄芩提取物对蛋鸡输卵管炎的防治作用[J]. 黑龙江畜牧兽医, 2025(4):78-85.

CHEN L H, ZHU X G, WEI Q, et al. Prevention and treatment effects of Scutellaria baicalensis extract on salpingitis in laying hens[J]. Heilongjiang Animal Science and Veterinary Medicine, 2025(4):78-85. (in Chinese)

[31]
王尧, 陈果, 张仕杰, 等. 中药通过调节肠道微生物-肠免疫轴治疗溃疡性结肠炎研究进展[J]. 中草药, 2024, 55(22):7857-7869.

WANG Y, CHEN G, ZHANG S J, et al. Research progress on traditional Chinese medicine in treatment of ulcerative colitis by regulating intestinal microbiota-gut immune axis[J]. Chinese Traditional and Herbal Drugs, 2024, 55(22):7857-7869. (in Chinese)

[32]
HU Q C, ZHANG W W, WU Z, et al. Baicalin and the liver-gut system:pharmacological bases explaining its therapeutic effects[J]. Pharmacological Research, 2021, 165:105444.

[33]
LU D D, YANG Y T, DU Y H, et al. The potential of Glycyrrhiza from “medicine food homology” in the fight against digestive system tumors[J]. Molecules, 2023, 28(23):7719.

DOI

[34]
SLEEM I, SMOLENSKY D, DIA V. Gastrointestinal health benefits of sorghum phenolics[J]. Plant Foods for Human Nutrition, 2024, 79(4):730-743.

DOI

[35]
BROZ P, PELEGRÍN P, SHAO F. The gasdermins,a protein family executing cell death and inflammation[J]. Nature Reviews Immunology, 2020, 20(3):143-157.

DOI

[36]
WANG Y P, GAO W Q, SHI X Y, et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin[J]. Nature, 2017, 547(7661):99-103.

DOI

[37]
王洁琼, 李戈, 汪少华, 等. 槲皮素通过SIRT1/STAT3/GSDME抑制炎症和焦亡缓解肾脏足细胞损伤[J]. 中国药理学通报, 2024, 40(7):1279-1287.

WANG J Q, LI G, WANG S H, et al. Quercetin alleviates podocyte injury by inhibiting inflammation and pyroptosis through SIRT1/STAT3/GSDME[J]. Chinese Pharmacological Bulletin, 2024, 40(7):1279-1287. (in Chinese)

[38]
杜建平. 沙棘黄酮通过Panx1对肠道病毒71型及其诱导细胞凋亡、焦亡的调控作用研究[D]. 硕士学位论文. 太原: 山西医科大学, 2023.

DU J P. The regulation of seabuckthorn flavonoids on enterovirus 71 induced apoptosis and pyroptosis via Panx1[D]. Master’s Thesis. Taiyuan: Shanxi Medical University, 2023. (in Chinese)

[39]
刘双慧, 张衍坤, 赵毅, 等. 基于NLRP3/Caspase-1/GSDMD通路探讨木犀草素对LPS/ATP诱导的细胞焦亡的保护机制[J]. 中草药, 2025, 56(6):1989-1998.

LIU S H, ZHANG Y K, ZHAO Y, et al. Exploring protective mechanism of luteolin against LPS/ATP-induced pyroptosis based on NLRP3/Caspase-1/GSDMD pathway[J]. Chinese Traditional and Herbal Drugs, 2025, 56(6):1989-1998. (in Chinese)

Outlines

/