RESEARCH PAPER

Effects of Yeast Selenium on Autophagy and Expression of PTEN-Induced Putative Kinase 1 and Parkin in Chicken Small Intestinal Cells Induced by Pesticide Diquat

  • YI Wanting , 1, 2 ,
  • XING Wenjing 1, 2 ,
  • TAN Yachao 1, 2 ,
  • LIU Ben , 1, 2, * ,
  • ZHENG Wenya , 1, 2, * ,
  • YANG Xue 1, 2 ,
  • HU Wei 1, 2 ,
  • FAN Qingcan 1, 2 ,
  • FANG Manxin 1, 2 ,
  • LUO Jie 1, 2 ,
  • CHEN Jianhua 1, 2 ,
  • ZHANG Yang 1, 2
Expand
  • 1 College of Life Science and Resources and Environment, Yichun University, Yichun 336000, China
  • 2 Research Center for Traditional Chinese Veterinary Medicine and Animal Embryo Engineering Technology,Yichun University, Yichun 336000, China
* LIU Ben, associate professor, E-mail: ;
ZHENG Wenya, associate professor, E-mail:

Received date: 2025-07-05

  Online published: 2026-01-13

Abstract

This study aimed to investigate the effects of selenium yeast (SeY) on diquat-induced autophagy in chicken small intestinal cells. One hundred and twenty 180-day-old Kangle yellow roosters were randomly divided into 4 groups with 3 replicates per group and 10 roosters per replicate. After a one-week adaptation period, the roosters were subjected to the following treatments: CON group (control group), fed a basal diet and intraperitoneally injected with 0.9% saline on day 14; DQ group (diquat-induced oxidative stress group), fed a basal diet and intraperitoneally injected with diquat (15 mg/kg BW, dissolved in 0.9% saline) on day 14; SeY+DQ group (SeY pretreatment+diquat induced oxidative stress group), fed an experiment diet which supplemented with 0.5 mg/kg SeY based on the basal diet and intraperitoneally injected with diquat (15 mg/kg BW, dissolved in 0.9% saline) on day 14; SeY group (SeY pretreatment group), fed an experiment diet which supplemented with 0.5 mg/kg SeY based on the basal diet and intraperitoneally injected with 0.9% saline on day 14. The experiment lasted for 18 days. At the end of the experiment, all chickens were euthanized, and small intestinal tissues were collected. The localization of proteins and the expression of proteins and genes of microtubule-associated protein 1 light chain 3β (LC3B), PTEN-induced putative kinase 1 (PINK1), and parkin (Parkin) in the duodenum, jejunum, and ileum were analyzed using immunohistochemistry, Western blot, and real-time quantitative PCR. The results showed as follows: 1) LC3B, PINK1, and Parkin proteins were primarily localized in the cytoplasm of intestinal villus mucosal epithelial cells, intestinal gland epithelial cells, and duodenal gland epithelial cells across all intestinal segments. 2) In the duodenum and jejunum, the relative expression level of LC3B protein in the DQ group was significantly higher than that in the CON and SeY+DQ groups (P<0.05). In the ileum, the relative expression level of LC3B protein was significantly decreased (P<0.05), while the relative expression level of PINK1 protein was significantly increased in the DQ group compared with the CON group (P<0.05). In both the duodenum and jejunum, the relative expression level of PINK1 protein in the SeY group was significantly higher than that in the CON group (P<0.05), and it in the SeY+DQ group was significantly higher than that in the DQ group (P<0.05). In the duodenum, the relative expression level of Parkin protein was significantly lower in the DQ and SeY groups than in the CON group (P<0.05). In the jejunum, compared with the CON group, the relative expression level of Parkin protein was significantly increased in the DQ group (P<0.05) but significantly decreased in the SeY group (P<0.05). 3) In the duodenum, the mRNA relative expression levels of LC3B and PINK1 genes in the DQ group were significantly higher than those in the CON group (P<0.05). The SeY+DQ group showed significantly higher mRNA relative expression levels of LC3B, PINK1 and Parkin genes compared with the DQ group (P<0.05). In the jejunum, the mRNA relative expression levels of LC3B and PINK1 genes in the CON and SeY+DQ groups were significantly higher than those in the DQ group (P<0.05), whereas the mRNA relative expression level of Parkin gene was significantly lower than that in the DQ group (P<0.05). In the ileum, the mRNA relative expression levels of LC3B, PINK1 and Parkin genes in the DQ group were significantly higher than those in the CON and SeY+DQ groups (P<0.05). The above results indicate that diquat treatment can induce an increase in autophagy level in chicken duodenal and jejunal cells, while dietary supplementation with yeast selenium reduces autophagy level, which may be associated with the mitochondrial autophagy PINK1/Parkin pathway.

Cite this article

YI Wanting , XING Wenjing , TAN Yachao , LIU Ben , ZHENG Wenya , YANG Xue , HU Wei , FAN Qingcan , FANG Manxin , LUO Jie , CHEN Jianhua , ZHANG Yang . Effects of Yeast Selenium on Autophagy and Expression of PTEN-Induced Putative Kinase 1 and Parkin in Chicken Small Intestinal Cells Induced by Pesticide Diquat[J]. Chinese Journal of Animal Nutrition, 2026 , 38(1) : 655 -666 . DOI: 10.12418/CJAN2026.050

微量元素硒在维持基本的生理学功能中起着重要的作用[1]。硒一方面能够通过调控肠道细胞的氧化还原状态、炎症信号通路及免疫细胞功能,进而减轻氧化应激与炎症反应;另一方面还能通过强化肠道上皮细胞间的紧密连接,以此维持肠黏膜屏障功能[2]。当前市面上已有多种类型添加硒元素的畜禽饲料产品,然而当饲粮中的硒含量未能达到动物机体所需的标准时,肠道微生物的动态平衡会受到显著影响,进而诱发多种肠道疾病,对肠道的消化吸收功能产生不良作用,不利于动物机体的生长发育进程。动物饲粮中含有无机硒和有机硒2种硒源,酵母硒(SeY)是一种高硒含量的有机硒源,由微生物转化而来,与无机硒相比,有机硒在动物体内具有更高的生物利用率和存留率。在基础饲粮中添加SeY可以促进蛋鸡小肠的发育,改善小肠黏膜的显微结构[3]。多项研究显示,肠道菌群失衡与肠道氧化应激反应容易诱发肠道炎症,而长期持续的慢性炎症状态与氧化应激相互作用,有较高风险进一步演变为肠癌,通过补充硒元素能够对肠癌起到预防和治疗作用[4-5]。敌草快(DQ)是一种化学结构类似百草枯的吡啶类除草剂,在我国禁用百草枯后成为主要替代品并广泛应用,其使用量剧增导致中毒病例显著增多[6]。DQ作为一种具有肝毒性的联吡啶类除草剂,具有刺激性,可经动物肠道系膜消化吸收。该物质会破坏细胞膜结构,干扰细胞正常生理功能,进而导致消化道黏膜受损、通透性升高,由此可能引发肠道感染,成为诱发肠道疾病的潜在因素[7]
自噬作为存在于所有真核细胞内的高度保守性溶酶体依赖分解代谢机制,其主要功能是借助溶酶体系统对细胞内过剩的细胞器及蛋白质聚合物进行清除,进而实现细胞代谢稳态维持与细胞器的更新迭代。研究显示,通过对自噬信号通路的调节控制,能够强化肠道黏膜屏障功能,维护肠道黏膜的完整性,保持肠道内环境的稳定状态,并缓解肠道损伤情况[8]。肠黏膜细胞自噬功能异常会诱发肠道炎症反应、免疫应答、氧化应激以及菌群失衡等问题,而这些因素又会进一步加剧肠黏膜屏障的损伤程度。因此,通过对肠黏膜细胞自噬过程进行调节,能够有效维持肠黏膜屏障结构的完整性[9]。线粒体自噬作为巨自噬的一种类型,可通过自噬过程实现线粒体稳态的维持,确保供能细胞器的功能正常,在细胞新陈代谢和凋亡等生理过程中发挥关键作用。当DQ中毒引发过量活性氧(ROS)产生时,这些ROS会促使线粒体膜发生去极化反应,进而启动线粒体自噬机制。作为机体的一种自我保护机制,线粒体自噬能够选择性地隔离并清除功能异常的线粒体[10],从而阻断过量ROS的产生。线粒体自噬能够通过自噬小体对受损线粒体进行选择性吞噬并降解,在维系细胞内环境稳定方面发挥关键作用。在PTEN诱导假定激酶1(PINK1)-帕金蛋白(Parkin)介导的线粒体自噬过程中,主要生成赖氨酸48(Lys48)和赖氨酸63(Lys63)连接类型的泛素链,这类泛素链借助泛素结合域与PINK1及Parkin产生交互作用,可推动线粒体外膜底物的提取进程,参与信号传导及自噬受体的募集过程,从而对线粒体自噬产生积极的促进效应[11]。由此可见,由PINK1-Parkin信号通路调控的线粒体自噬在维持细胞正常功能方面发挥着重要作用。
由于DQ在农业生产中的广泛使用,当今畜禽养殖行业广受DQ带来的生产性能影响(死亡、生长受阻和繁殖障碍等),给养殖行业带来了巨大的经济损失。本研究探讨SeY对农药DQ诱导的鸡小肠细胞自噬及PINK1和Parkin表达的影响,为研究SeY缓解农药DQ毒害作用提供理论依据。

1 材料与方法

1.1 试验材料

DQ浓储液购自山东圣鹏科技股份有限公司,利用0.9%生理盐水稀释至150 mg/mL;SeY购自浙江东成生物科技股份有限公司。

1.2 试验设计

动物试验方案通过宜春学院动物管理和使用委员会的伦理批准(批准号:JXSTUDKY2022009)。
将购自同一批次(180日龄)、体重为(1.1±0.1) kg且健康的120只康乐黄公鸡随机分成4组,分别标记为CON组(对照组)、DQ组(敌草快诱导氧化应激组)、SeY+DQ组(SeY预处理+敌草快诱导氧化应激组)及SeY组(SeY预处理组),每组3个重复,每个重复10只公鸡。经适应性饲养1周后,CON组和DQ组饲喂基础饲粮,SeY+DQ组和SeY组饲喂添加在基础饲粮中0.5 mg/kg SeY的试验饲粮,饲喂期为18 d,在第14天腹腔注射0.9%生理盐水(CON组和SeY组)或DQ溶液(DQ组和SeY+DQ组)。基础饲粮参考武慧敏等[12]的研究结果及《黄羽肉鸡营养需要量》(NY/T 3645—2020)进行配制,其组成及营养水平见表1。DQ的给药量为15 mg/kg BW,DQ溶解到0.9%生理盐水中制成DQ溶液(0.1 mL/kg BW)。生理盐水的注射剂量与DQ溶液的注射剂量是一致的。试验结束时,从4组的每个重复中随机选取3只公鸡,利用颈动脉放血法处死,并快速采集2份小肠组织样品,一份放入4%多聚甲醛溶液中进行固定,用于免疫组织化学检测,另一部分用锡纸包好之后,迅速放入液氮中速冻,再转移到-80 ℃冰箱中保存,用于蛋白质免疫印迹和实时荧光定量PCR检测。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 70.95
麸皮Wheat bran 6.68
猪油Pork oil 1.60
豆粕Soybean meal 18.25
磷酸氢钙CaHPO4 0.51
石粉Limestone 1.30
食盐NaCl 0.18
氯化胆碱Choline chloride 0.15
赖氨酸Lys 0.15
蛋氨酸Met 0.10
多维Multi-vitamin1) 0.03
多矿Multi-mineral1) 0.10
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 12.58
粗蛋白质CP 14.94
赖氨酸Lys 0.81
蛋氨酸Met 0.34
苏氨酸Thr 0.55
钙Ca 0.71
总磷TP 0.45
非植酸磷NPP 0.22

1)多维和多矿为每千克饲粮提供Multi-vitamin and multi-mineral provided the following per kilogram of the diet:VA 8 000 IU,VB12 0.015 mg,VD3 2 500 IU,VE 20 IU,VK 0.5 mg,生物素 biotin 0.16 mg,叶酸 folic acid 0.60 mg,尼克酸 nicotinic acid 40 mg,泛酸 pantothenic acid 30 mg,吡哆醇 pyridoxine 4 mg,核黄素 riboflavin 5 mg,硫胺素 thiamine 3 mg,Cu (CuSO4) 8 mg,Zn (ZnSO4) 40 mg,Fe (FeSO4) 80 mg,Mn (MnSO4) 60 mg,I (KI) 0.35 mg,Se (Na2SeO3) 0.15 mg。

2)代谢能、赖氨酸、蛋氨酸、苏氨酸和非植酸磷参照NY/T 3645—2020计算得出,粗蛋白质、钙和总磷分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018测定。ME, Lys, Met, Thr and NPP were calculated according to NY/T 3645—2020, while CP, Ca and TP were determined in accordance with GB/T 6432—2018, GB/T 6436—2018, and GB/T 6437—2018, respectively.

1.3 免疫组织化学法检测鸡小肠中微管相关蛋白1轻链3β(LC3B)、PINK1和Parkin蛋白定位情况

将在4%多聚甲醛溶液中进行固定的小肠组织取出,按照常规程序制作石蜡切片,石蜡切片经脱蜡和水化后,按照兔二步法检测试剂盒(北京中杉金桥生物技术有限公司)说明书进行阻断和封闭,含吐温-20的磷酸盐缓冲液(PBST)洗净切片上的封闭液后,滴加一抗工作液[LC3B、PINK1和Parkin抗体分别按1∶400、1∶100和1∶300进行稀释,阴性对照用磷酸盐缓冲液(PBS)代替],湿盒4 ℃孵育17 h,PBST浸泡3次,3 min/次,随后继续按照兔二步法检测试剂盒说明书进行操作;然后用DAB显色液显色,苏木精复染,经盐酸酒精分化后,依次经上行梯度酒精脱水、二甲苯透明,封片后在显微镜下判读染色结果。DAB显色部位呈黄色为阳性,呈淡黄色为弱阳性,不显色为阴性。

1.4 蛋白质免疫印迹分析不同鸡小肠LC3B、PINK1和Parkin蛋白表达情况

使用总蛋白提取试剂盒(北京普利莱基因技术有限公司)提取小肠组织总蛋白,使用十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶制备试剂盒(武汉博士德生物工程有限公司)根据蛋白质分子质量大小配制合适浓度的凝胶进行电泳,将分离后的蛋白转移至聚偏二氟乙烯(PVDF)膜(Merck Millipore,美国)上,将PVDF膜用5%脱脂奶粉封闭2 h后,于4 ℃一抗孵育盒中孵育过夜(16~17 h),再将其放置于二抗孵育液内在摇床上室温孵育2 h,显影成像并拍照,最后用Image J软件对条带进行灰度值测定。

1.5 实时荧光定量PCR检测鸡小肠中LC3BPINK1和Parkin基因表达情况

使用TRIzol法提取各组织总RNA,并测定RNA浓度,利用HiScript® Ⅲ RT SuperMix for qPCR R323-01反转录试剂盒(南京诺唯赞生物科技股份有限公司)将所提取的RNA反转录成cDNA。试验所需的上游引物(forward primer)和下游引物(reverse primer)均是根据GenBank库中的所需基因的mRNA序列使用Primer 6.0软件设计,筛选出的最佳引物的序列均由深圳华大基因股份有限公司合成,引物序列如表2所示。根据ChamQ Universal SYBR qPCR Master Mix Q711-02试剂盒(南京诺唯赞生物科技股份有限公司)进行PCR反应,反应仪器为实时荧光定量PCR仪(Applied Biosystems,美国)。反应结束后采集各反应体系的Ct值,以β-肌动蛋白(β-actin)为内参基因,利用2-ΔΔCt法计算各样品中相应目的基因的mRNA相对表达量。
表2 PCR引物序列

Table 2 Primer sequence for PCR

基因
Genes
引物序列
Primer sequence (5'—3')
产物长度
Product length/bp
登录号
Accession number
微管相关蛋白1轻链3β LC3B F:CTTCCTCCTGGTGAACGGAC
R:CACCATGTACAGGAAGCCGT
100 NM_001031461.2
PTEN诱导假定激酶1 PINK1 F:CAGCCACAAGGACTGCCTTA
R:ATCCCTCTGGGATTCAGGCT
199 NM_001389481.2
帕金蛋白Parkin F:TGCGGGTGATTTTTGCAGGA
R:TGCCTCCAGCATGATTGTCT
147 XM_419615.8
β-肌动蛋白β-actin F:CCGTGCTGTGTTCCCATCTA
R:TCTGGGCTTCATCACCAACG
98 NM_205518.2

1.6 统计分析

试验所得数据利用SPSS 23.0软件进行单因素方差分析和多重比较(LSD法),所有数据均以“平均值±标准差(mean±SD)”形式表示,P<0.05为存在显著差异。使用GraphPad Prism 9.0软件绘制柱状图。

2 结果与分析

2.1 LC3B、PINK1和Parkin在不同组别鸡小肠中的定位情况
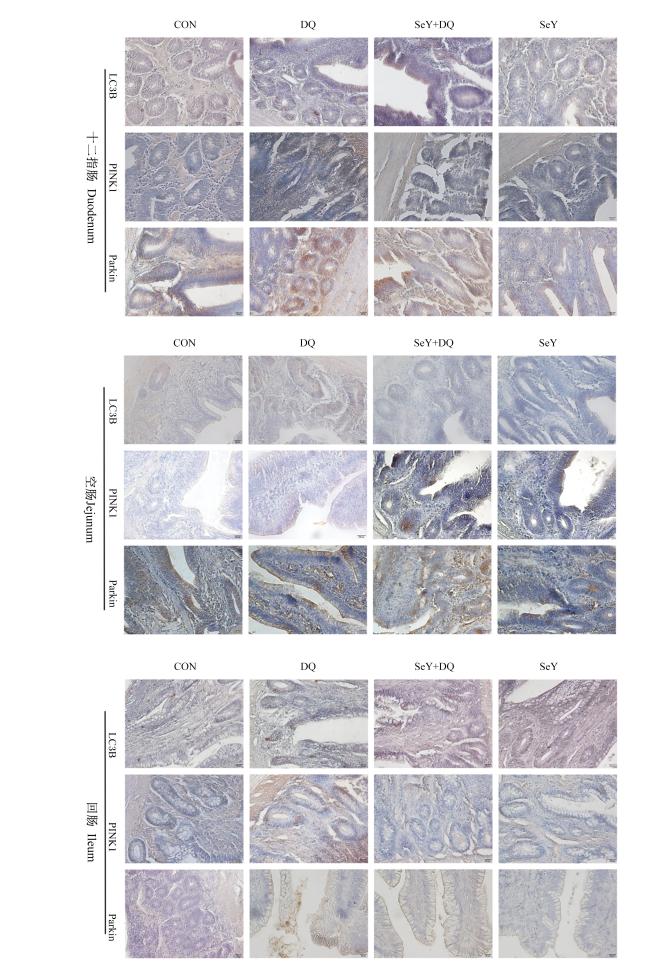
LC3B、PINK1和Parkin在不同组别鸡十二指肠、空肠和回肠中定位的免疫组织化学检测结果见图1。LC3B在CON组十二指肠、空肠和回肠的肠绒毛黏膜上皮细胞胞质中弱阳性表达,在十二指肠的少数小肠腺和十二指肠腺的腺上皮中可见零散分布的阳性表达细胞,在空肠和回肠少数小肠腺的腺上皮中也可见零散分布的阳性表达细胞;LC3B在其他3个组十二指肠、空肠和回肠的分布也主要集中在肠绒毛黏膜和小肠腺上皮细胞胞质中,但在DQ组的各肠段的小肠腺上皮中可见较多的阳性表达细胞,相比DQ组,SeY+DQ组和SeY组的阳性表达细胞在各段肠段分布减少。PINK1和Parkin在小肠中的分布相似,主要分布在各肠段的肠绒毛黏膜上皮和小肠腺上皮细胞胞质中。PINK1和Parkin在CON组和SeY组的十二指肠、空肠和回肠的肠绒毛黏膜上皮和小肠腺上皮细胞胞质中弱阳性表达,但在DQ组各肠段的肠绒毛黏膜上皮和小肠腺上皮中可见较多分布的阳性表达细胞,相比DQ组,SeY+DQ组PINK1和Parkin在各段肠段的分布减少。
图1 LC3B、PINK1和Parkin在不同组别鸡十二指肠、空肠和回肠中的定位(免疫组织化学法)

CON:CON组 CON group;DQ:DQ组 DQ group;SeY-DQ:SeY-DQ组 SeY-DQ group;SeY:SeY组 SeY group。LC3B:微管相关蛋白1轻链3β microtubule-associated protein 1 light chain 3β;PINK1:PTEN诱导假定激酶1 PTEN-induced putative kinase 1;Parkin:帕金蛋白 parkin;β-actin:β-肌动蛋白。 下图同 the same as below。

Fig.1 Localization of LC3B, PINK1 and Parkin in duodenum, jejunum and ileum of chickens across different groups (immunohistochemistry, 400×)

2.2 LC3B、PINK1和Parkin蛋白在不同组别鸡小肠中的表达情况

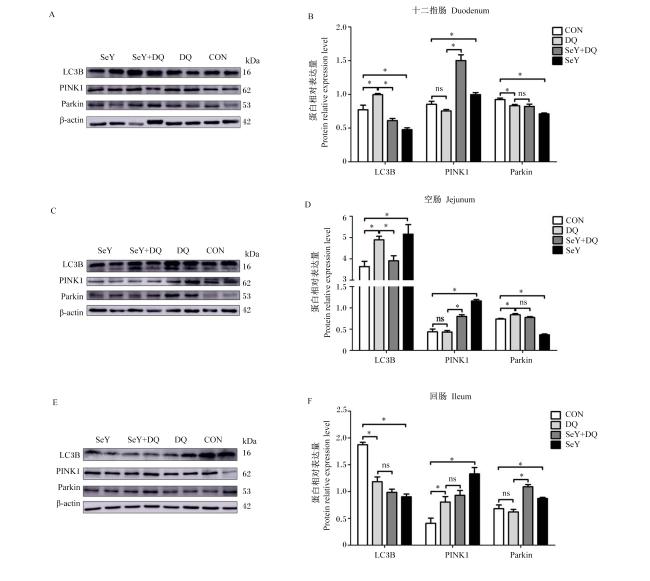
LC3B、PINK1和Parkin蛋白在不同组别鸡十二指肠、空肠和回肠表达的蛋白质免疫印迹检测结果见图2。在十二指肠中,与CON组相比,LC3B蛋白在DQ组的相对表达量显著升高(P<0.05),相反,其在SeY组的相对表达量显著降低(P<0.05),同时,LC3B蛋白在SeY+DQ组的相对表达量相比DQ组显著降低(P<0.05);PINK1蛋白在SeY组的相对表达量显著高于CON组(P<0.05),同时,PINK1蛋白在SeY+DQ组的相对表达量显著高于DQ组(P<0.05);Parkin蛋白的相对表达量在DQ组和SeY组显著低于CON组(P<0.05)。
图2 LC3B、PINK1和Parkin蛋白在不同组别鸡十二指肠(A、B)、空肠(C、D)和回肠(E、F)的表达

*:差异显著(P<0.05);ns:差异不显著(P>0.05)。下图同。

Fig.2 Expression of LC3B, PINK1 and Parkin proteins in duodenum (A and B), jejunum (C and D), and ileum (E and F) of chickens across different groups

*: significant difference (P<0.05); ns: non-significant difference (P>0.05). The same as below.

在空肠中,与CON组相比,LC3B蛋白在DQ组和SeY组的相对表达量显著升高(P<0.05),其在SeY+DQ组的相对表达量显著低于DQ组(P<0.05);PINK1蛋白在SeY组的相对表达量显著高于CON组(P<0.05),同时,PINK1蛋白在SeY+DQ组相对表达量显著高于DQ组(P<0.05);与CON组相比,Parkin蛋白在DQ组的相对表达量显著升高(P<0.05),相反,其在SeY组的相对表达量显著降低(P<0.05)。在回肠中,与CON组相比,LC3B蛋白在DQ组和SeY组的相对表达量显著降低(P<0.05),相反,PINK1蛋白在DQ组和SeY组的相对表达量显著升高(P<0.05);Parkin蛋白在SeY组相对表达量显著高于CON组(P<0.05),同时其在SeY+DQ组的相对表达量显著高于DQ组(P<0.05)。

2.3 LC3BPINK1和Parkin基因在不同组别鸡小肠中的表达情况

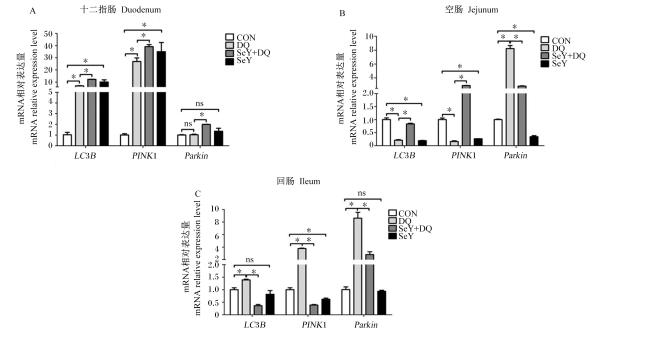
LC3BPINK1和Parkin基因在不同组别鸡十二指肠、空肠和回肠表达的qPCR检测结果见图3。十二指肠中,与CON组相比,LC3BPINK1基因的mRNA相对表达量在DQ组和SeY组均显著升高(P<0.05),LC3BPINK1和Parkin基因的mRNA相对表达量在SeY+DQ组显著高于DQ组(P<0.05)。在空肠中,LC3BPINK1基因的mRNA相对表达量在CON组和SeY+DQ组显著高于DQ组(P<0.05),同时其在CON组显著高于SeY组(P<0.05);相反,与DQ组相比,Parkin基因的mRNA相对表达量在CON组和SeY+DQ组显著降低(P<0.05),而其在CON组则显著高于SeY组(P<0.05)。回肠中,与DQ组相比,LC3BPINK1和Parkin基因的mRNA相对表达量在CON组和SeY+DQ组显著降低(P<0.05),PINK1基因的mRNA相对表达量在CON组显著高于SeY组(P<0.05)。
图3 LC3BPINK1和Parkin基因在不同组别鸡十二指肠(A)、空肠(B)和回肠(C)中的表达

Fig.3 Expression of LC3B, PINK1 and Parkin genes in duodenum (A), jejunum (B) and ileum (C) of chickens across different groups

3 讨论

在畜禽的生长发育与繁殖阶段,其健康会受到生存环境中多种因素的影响,而农药DQ所带来的影响便是其中一项重要威胁。DQ是一种广泛使用的非选择性除草剂,属于联吡啶类,因其能产生ROS并诱导包括肝脏和肠道在内的多种组织的氧化损伤,常用于建立应激模型。DQ毒性的主要表现为借助单电子还原与氧化还原循环生成高反应活性自由基,如超氧阴离子。当机体抗氧化防御体系难以有效应对时,这些过量自由基会引发氧化应激反应,进而造成线粒体功能异常、细胞内稳态失衡、炎症反应激活以及细胞周期停滞,最终致使细胞死亡[13]。研究表明,在应用期间意外暴露于DQ会导致不同的毒性效应[14]。当DQ中毒发生后,会借助氧化还原反应对线粒体呼吸复合物Ⅰ的活性产生抑制效应,进而使得线粒体膜电位出现变化。这种变化促使线粒体外膜上的蛋白激酶PINK1发生聚集,由此引发Parkin蛋白的招募与激活过程。处于活化状态的Parkin蛋白能够推动线粒体外膜蛋白的泛素化进程,并加速其降解,最终使得受损的线粒体通过自噬机制被清除[6]。微管相关蛋白1轻链3(LC3)作为自噬小体的标志性蛋白,在自噬小体的形成过程中发挥作用,其主要以LC3Ⅰ和LC3Ⅱ 2种亚型存在。其中,LC3Ⅱ亚型会与自噬小体的外膜及内膜相结合,进而介导自噬过程的发生[15]。本试验进行的免疫组织化学和蛋白质免疫印迹检测结果表明,与CON组相比,LC3B蛋白在DQ组中的分布与表达量均明显增加,表明DQ处理会导致鸡十二指肠和空肠细胞自噬水平升高,可能与受损线粒体的清除相关。另有研究表明,自噬对维持细胞内环境稳定起到至关重要的作用[16],自噬的激活可减轻损伤并恢复细胞功能[17]
硒是动物机体生长发育进程中不可或缺的必需元素,作为体内磷脂氢过氧化物谷胱甘肽过氧化物酶(PHGPx)与谷胱甘肽过氧化物酶(GSH-Px)的关键构成组分,能够清除细胞内生成的过氧化氢及脂质过氧化物,抑制其与活性自由基及细胞膜发生反应,从而减轻细胞损伤[18]。硒缺乏可引起家畜多种疾病,如生长不良、肝脏坏死、胰腺纤维化、白肌病、渗出性素质、免疫力低下、甲状腺功能减退、生育能力和孵化率降低等[19]。SeY是在酵母培养过程中通过添加亚硒酸钠并经微生物发酵转化所获得的产物,作为一种具有显著优势的有机硒源而被广泛应用。研究表明,与无机硒相比,SeY中的硒具备更高的生物利用度,且在停止补充后仍能较长时间维持体内硒水平的稳定提升;此外,SeY中的硒以有机形态存在,毒性较低,更易于机体的消化、吸收和利用[19-20]。肠道是机体吸收硒的首要器官[21]。硒缺乏会对动物肠道健康产生不利影响,包括改变肠道微生物组成并引发肠道炎症[22]。研究显示,硒在抗炎、抗氧化及抗组织损伤等方面发挥重要作用,因而有助于维持肠道结构与功能的完整性,并增强肠道免疫功能[23]。饲粮中添加硒可通过调节肉鸡十二指肠和空肠中肌球蛋白轻链激酶的转录水平,拮抗高氟引起的肉鸡十二指肠和空肠肌球蛋白轻链激酶网络紊乱和生长抑制[24]。另有研究发现,SeY能够通过降低促炎细胞因子水平,并调节肠道菌群及其代谢产物,从而减轻葡聚糖硫酸钠诱导的小鼠慢性结肠炎症状[3]。在体内,镉诱导肝细胞线粒体自噬过度激活并阻断线粒体自噬流,而与硒联合处理可减轻镉诱导的线粒体自噬过度激活并恢复线粒体自噬流[25]
本研究结果表明,与DQ组相比,饲喂SeY后,LC3B蛋白在十二指肠和回肠中的相对表达量均显著下降,表明SeY能降低鸡小肠细胞自噬水平。王章流等[26]的研究显示,雷公藤多苷通过下调溃疡性结肠炎小鼠结肠组织中巨噬细胞LC3Ⅱ/Ⅰ蛋白的表达,降低巨噬细胞自噬水平。自噬具有维持细胞稳态的重要生理作用[27],细胞试验、动物试验与临床研究已阐明自噬参与肠上皮屏障的维持以及自噬在肠道稳态和疾病中具有多种作用[28]。有研究显示,硒缺乏通过激活鸡Toll样受体4(ChTLR4)/髓样分化因子88(MyD88)/核因子-κB(NF-κB)通路参与鸡法氏囊自噬的发生[29]。本试验结果表明,DQ处理诱导鸡小肠细胞自噬水平增加,饲粮中加适量的SeY后细胞自噬水平降低,但是当SeY的添加量较高时,不但不会降低细胞自噬,反而会诱导细胞自噬增加,正如本试验中SeY单独添加做一组时,PINK1蛋白在空肠和回肠中相对表达量是上调而非下调的。这表明适量的硒与细胞自噬在鸡小肠损伤与稳态恢复过程中可能发挥重要作用。
自噬是细胞为应对内外源刺激而启动的一种关键分解代谢过程,对维持细胞稳态至关重要。其中,LC3作为自噬过程的关键执行蛋白,是检测细胞自噬活动的经典标志物[30]。线粒体自噬作为自噬的一种特殊形式,指细胞通过自噬机制选择性清除受损线粒体的生物学过程,其调控机制多样,主要包括PINK1/Parkin依赖性途径与非PINK1/Parkin依赖性途径[31]。目前普遍认为,PINK1/Parkin通路是介导线粒体自噬最为经典的机制之一[32-33]。Parkin是一种定位于细胞质中的E3泛素连接酶,而PINK1是一种位于线粒体中的丝氨酸/苏氨酸激酶。当线粒体受损,跨膜电位崩溃时,PINK1的转位与降解过程受阻,进而稳定聚集于线粒体外膜。在此处,PINK1可招募胞质中的Parkin并使其发生磷酸化(形成P-Parkin),从而启动线粒体自噬程序[34]。因此,PINK1-Parkin通路常被用于评估线粒体自噬过程中自噬体的形成与降解动态,而LC3、PINK1和Parkin等关键因子的表达水平也成为研究线粒体自噬的重要指标[35-36]。研究表明,白藜芦醇可通过上调Parkin与PINK1的表达,增强小鼠肠道的抗氧化能力,从而保护肠道屏障功能,缓解氧化应激诱导的线粒体损伤,并促进线粒体自噬的发生[37]。另有报道显示,氧化苦参碱能够通过激活PINK1/Parkin通路所介导的线粒体自噬,抑制结直肠癌细胞的增殖[38]。本试验结果表明,PINK1和Parkin广泛分布于鸡小肠绒毛黏膜上皮、小肠腺上皮和十二指肠腺上皮细胞的胞质中,且其基因和蛋白的相对表达量在不同组间产生了变化,表明鸡小肠细胞自噬的发生可能与线粒体自噬PINK1/Parkin通路有一定关联。

4 结论

SeY可能通过调节细胞自噬相关分子LC3B以及PINK1/Parkin通路的表达,影响DQ诱导下鸡小肠细胞自噬过程。本研究从细胞自噬角度揭示了SeY对DQ诱导的鸡小肠损伤的潜在保护作用,可为研究SeY缓解农药DQ毒害作用提供理论依据。
[1]
ZHANG F, LI X L, WEI Y M. Selenium and selenoproteins in health[J]. Biomolecules, 2023, 13(5):799.

DOI

[2]
何羿文, 黄乐, 周锡红, 等. 硒和硒蛋白与宿主肠道健康的互作调节机制[J]. 中国科学(生命科学), 2023, 53(8):1055-1066.

HE Y W, HUANG L, ZHOU X H, et al. Role of selenium and selenoprotein in gut health[J]. Scientia Sinica (Vitae), 2023, 53(8):1055-1066. (in Chinese)

[3]
WU Z Y, LI Y, JIANG M, et al. Selenium yeast alleviates dextran sulfate sodium-induced chronic colitis in mice by reducing proinflammatory cytokines and regulating the gut microbiota and their metabolites[J]. Journal of Inflammation Research, 2025, 17:2023-2037.

DOI

[4]
PETERS K M, CARLSON B A, GLADYSHEV V N, et al. Selenoproteins in colon cancer[J]. Free Radical Biology & Medicine, 2018, 127:14-25.

DOI

[5]
KIM S J, CHOI M C, PARK J M, et al. Antitumor effects of selenium[J]. International Journal of Molecular Sciences, 2021, 22(21):11844.

DOI

[6]
吴瑾, 陆元兰, 张炉英, 等. PINK1/Parkin信号通路调控线粒体自噬在敌草快中毒神经元损伤中作用的研究进展[J]. 东南大学学报(医学版), 2021, 40(2):238-242.

WU J, LU Y L, ZHANG L Y, et al. Research progress on the role of PINK1/Parkin signaling pathway in regulating mitophagy in neuronal damage induced by diquat poisoning[J]. Journal of Southeast University (Medical Science Edition), 2021, 40(2):238-242. (in Chinese)

[7]
白冬红, 陈甜甜, 孙尹双, 等. 敌草快诱导的氧化应激对肉鸡生产性能、肝脏功能、免疫功能和抗氧化性能的影响[J]. 中国兽医杂志, 2024, 60(3):58-65.

BAI D H, CHEN T T, SUN Y S, et al. Effects of diquat-induced oxidative stress on performance,liver function,immune function and antioxidant capacity of broilers[J]. Chinese Journal of Veterinary Medicine, 2024, 60(3):58-65. (in Chinese)

[8]
贾骐瑄, 王猛, 秦雨, 等. 中医药调控自噬维持肠黏膜屏障的研究进展[J]. 中国中西医结合外科杂志, 2023, 29(2):276-282.

JIA Q X, WANG M, QIN Y, et al. Research progress on traditional Chinese medicine regulating autophagy to maintain intestinal mucosal barrier[J]. Chinese Journal of Surgery of Integrated Traditional and Western Medicine, 2023, 29(2):276-282. (in Chinese)

[9]
黄茂光, 谢胜, 王金鑫, 等. 自噬在溃疡性结肠炎中的作用及中药干预研究进展[J]. 中国实验方剂学杂志, 2024, 30(4):281-289.

HUANG M G, XIE S, WANG J X, et al. Role of autophagy in ulcerative colitis and Chinese medicine intervention:a review[J]. Chinese Journal of Experimental Traditional Medical Formulae, 2024, 30(4):281-289. (in Chinese)

[10]
SAITA S, SHIRANE M, NAKAYAMA K I. Selective escape of proteins from the mitochondria during mitophagy[J]. Nature Communications, 2013, 4(1):1410.

DOI

[11]
张明军, 罗俊一, 杨毅宁.PINK1、 Parkin与泛素协同调控线粒体自噬的研究进展[J]. 医学综述, 2020, 26(10):1887-1892.

ZHANG M J, LUO J Y, YANG Y N. Research progress in PINK1,Parkin and ubiquitin concerted regulation of mitophagy[J]. Medical Recapitulate, 2020, 26(10):1887-1892. (in Chinese)

[12]
武慧敏, 阿依姑·苏来曼, 白俊宇, 等. 80-120日龄淮北麻公鸡代谢能和粗蛋白质需要量[J]. 动物营养学报, 2024, 36(1):279-294.

DOI

WU H M, AYIGU S, BAI J Y, et al. Metabolizable energy and crude protein requirements of Huaibei partridge chickens aged from 80 to 120 days[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):279-294. (in Chinese)

[13]
YANG S, HUO M, SU Z X, et al. The impact of dietary supplementation of quercetagetin on growth,antioxidant capacity,and gut microbiota of diquat-challenged broilers[J]. Frontiers in Microbiology, 2024, 15:1453145.

[14]
CHEN J X, SU Y L, LIN R Z, et al. Effects of acute diquat poisoning on liver mitochondrial apoptosis and autophagy in ducks[J]. Frontiers in Veterinary Science, 2021, 8:727766.

[15]
杨杨, 陈标, 徐阿慧, 等. 牛分枝杆菌PE_PGRS21蛋白抑制细胞自噬的研究[J/OL]. 中国预防兽医学报, 2025:1-7(2025-03-27)[2025-07-01]. https://link.cnki.net/urlid/23.1417.S.20250327.1442.004.html.

YANG Y, CHEN B, XU A H, et al. Study on the inhibition of autophagy by mycobacterium bovis protein PE_PGRS21[J/OL]. Chinese Journal of Preventive Veterinary Medicine, 2025:1-7(2025-03-27)[2025-07-01]. https://link.cnki.net/urlid/23.1417.S.20250327.1442.004.html. (in Chinese)

[16]
LIU Y, LEVINE B. Autosis and autophagic cell death:the dark side of autophagy[J]. Cell Death and Differentiation, 2015, 22(3):367-376.

DOI

[17]
HAN J B, WANG Y G. mTORC1 signaling in hepatic lipid metabolism[J]. Protein & Cell, 2018, 9(2):145-151.

[18]
ZHANG M Y, LIU J, YU Z H, et al. Supplementation with organic yeast-derived selenium provides immune protection against experimental necrotic enteritis in broiler chickens[J]. Microbial Pathogenesis, 2024, 192:106691.

[19]
LIU J M, WANG Z, LI C, et al. Effects of selenium dietary yeast on growth performance,slaughter performance,antioxidant capacity,and selenium deposition in broiler chickens[J]. Animals, 2023, 13(24):3830.

DOI

[20]
HABOTTA O A, WANG X Y, OTHMAN H, et al. Selenium-enriched yeast modulates the metal bioaccumulation,oxidant status,and inflammation in copper-stressed broiler chickens[J]. Frontiers in Pharmacology, 2022, 13:1026199.

[21]
SPECKMANN B, STEINBRENNER H. Selenium and selenoproteins in inflammatory bowel diseases and experimental colitis[J]. Inflammatory Bowel Diseases, 2014, 20(6):1110-1119.

DOI PMID

[22]
WANG F H, SUN N, ZENG H Q, et al. Selenium deficiency leads to inflammation,autophagy,endoplasmic reticulum stress,apoptosis and contraction abnormalities via affecting intestinal flora in intestinal smooth muscle of mice[J]. Frontiers in Immunology, 2022, 13:947655.

[23]
HE X J, LIN Y C, LIAN S, et al. Selenium deficiency in chickens induces intestinal mucosal injury by affecting the mucosa morphology,SIgA secretion,and GSH-Px activity[J]. Biological Trace Element Research, 2020, 197(2):660-666.

DOI

[24]
CHEN S Y, XUE Y J, SHEN Y T, et al. Effects of different selenium sources on duodenum and jejunum tight junction network and growth performance of broilers in a model of fluorine-induced chronic oxidative stress[J]. Poultry Science, 2022, 101(3):101664.

DOI

[25]
ZHANG H L, YAN J, XIE D N, et al. Selenium restored mitophagic flux to alleviate cadmium-induced hepatotoxicity by inhibiting excessive GPER1-mediated mitophagy activation[J]. Journal of Hazardous Materials, 2024, 475:134855.

[26]
王章流, 钟继红, 刘英超, 等. 雷公藤多苷片对溃疡性结肠炎小鼠结肠巨噬细胞自噬的影响[J]. 中国中西医结合消化杂志, 2016, 24(6):422-424.

WANG Z L, ZHONG J H, LIU Y C, et al. Effect of tripterygium glycosides on the autophagy of colon macrophage in mice with ulcerative colitis[J]. Chinese Journal of Integrated Traditional and Western Medicine on Digestion, 2016, 24(6):422-424. (in Chinese)

[27]
夏瑀培, 王诚谱, 毛旭虎, 等. 线粒体自噬在感染性疾病中的作用机制研究进展[J]. 微生物学通报, 2021, 48(4):1340-1347.

XIA Y P, WANG C P, MAO X H, et al. Mitophagy in infectious diseases:a review[J]. Microbiology China, 2021, 48(4):1340-1347. (in Chinese)

[28]
COSIN-ROGER J, SIMMEN S, MELHEM H, et al. Hypoxia ameliorates intestinal inflammation through NLRP3/mTOR downregulation and autophagy activation[J]. Nature Communications, 2017, 8(1):98.

DOI

[29]
ZHANG R L, LIU Q, GUO R, et al. Selenium deficiency induces autophagy in chicken bursa of fabricius through ChTLR4/MYD88/NF-κB pathway[J]. Biological Trace Element Research, 2022, 200(7):3303-3314.

DOI

[30]
ZHANG C X, YU X Y, GAO J H, et al. PINK1/Parkin-mediated mitophagy was activated against 1,4-benzoquinone-induced apoptosis in HL-60 cells[J]. Toxicology in Vitro, 2018, 50:217-224.

DOI PMID

[31]
PARK Y S, CHOI S E, KOH H C. PGAM5 regulates PINK1/Parkin-mediated mitophagy via DRP1 in CCCP-induced mitochondrial dysfunction[J]. Toxicology Letters, 2018, 284:120-128.

DOI PMID

[32]
马莉, 赵俊杰, 王鹏, 等. 黄芪甲苷通过PINK1/Parkin通路介导的线粒体自噬途径减轻大鼠脑缺血再灌注损伤[J]. 中国病理生理杂志, 2025, 41(3):501-508.

MA L, ZHAO J J, WANG P, et al. Astragaloside Ⅳ protects against rat cerebral ischemia-reperfusion inju-ry via PINK1/Parkin mitophagy-associated pathway[J]. Chinese Journal of Pathophysiology, 2025, 41(3):501-508. (in Chinese)

[33]
李媛媛, 王天玉, 李梦, 等. 硒代蛋氨酸通过PINK1/Parkin介导的线粒体自噬缓解氟诱导的抑郁样行为[J]. 畜牧兽医学报, 2024, 55(7):3213-3224.

DOI

LI Y Y, WANG T Y, LI M, et al. Selenomethionine,through PINK1/Parkin-mediated mitochondrial autophagy,alleviates fluoride-induced depressive-like behavior[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(7):3213-3224. (in Chinese)

[34]
QIU Z, WANG H Y, LI G Q, et al. Lactobacillus salivarius ameliorates AFB1-induced hepatotoxicity via PINK1/Parkin-mediated mitophagy in geese[J]. Ecotoxicology and Environmental Safety, 2024, 280:116574.

[35]
NARENDRA D P, YOULE R J. The role of PINK1-Parkin in mitochondrial quality control[J]. Nature Cell Biology, 2024, 26(10):1639-1651.

DOI PMID

[36]
CHEN D W, RAN D, WANG C, et al. Role of mitochondrial dysfunction and PINK1/parkin-mediated mitophagy in Cd-induced hepatic lipid accumulation in chicken embryos[J]. Life Sciences, 2021, 284:119906.

[37]
ZHA C, XIAO H, SONG B, et al. Resveratrol promotes mammary cell proliferation and antioxidation capacity during pregnancy and lactation in mice[J]. Journal of Applied Microbiology, 2021, 130(2):450-463.

DOI

[38]
LIANG L, SUN W L, WEI X X, et al. Oxymatrine suppresses colorectal cancer progression by inhibiting NLRP3 inflammasome activation through mitophagy induction in vitro and in vivo[J]. Phytotherapy Research, 2023, 37(8):3342-3362.

DOI

Outlines

/