RESEARCH PAPER

Effects of Propionibacterium Metabolites Preparation on Performance, Milk Quality, Nutrient Apparent Digestibility, Rumen Fermentation Parameters and Rumen Microbiota of Dairy Cows

  • LIU Xinbing , 1, 2 ,
  • ZHEN Hu 1, 2 ,
  • LIU Jingjing 3 ,
  • MA Xi 4 ,
  • LIU Qiaolan 3 ,
  • YAO Kun 1, 2 ,
  • LYU Jiaying 1, 2 ,
  • WANG Xun 1, 2 ,
  • YANG Yingkui 1, 2 ,
  • WANG Shuxiang , 1, 2, * ,
  • LI Shengli , 4, *
Expand
  • 1 Qinghai University, Xining 810016, China
  • 2 Key Laboratory of Animal Nutrition and Feed Science for Plateau Grazing Livestock of Qinghai Province, Xining 810016, China
  • 3 Jiangxi Haoshiwo Biotechnology Co., Ltd., Yichun 336000, China
  • 4 China Agricultural University, Beijing 100083, China
* WANG Shuxiang, associate professor, E-mail: ;
LI Shengli, professor, E-mail:

Received date: 2025-07-09

  Online published: 2026-02-12

Abstract

This study aimed to investigate the effects of Propionibacterium metabolites preparation on performance, milk quality, nutrient apparent digestibility, rumen fermentation parameters and rumen microbiota of dairy cows. A total of 45 healthy high-yielding Holstein dairy cows with similar body weight and age, lactation days of (66.9±7.8) d and milk yield of (38.42±0.70) kg/d were randomly assigned to 3 groups with 15 replicates per group and 1 cow per replicate. The control group (group CON) was fed a basal diet, and the experimental groups were fed basal diets additional supplemented with 0.2% (group A) and 0.4% (group B) Propionibacterium metabolites preparation, respectively. The pre-experimental period lasted for 7 days, and the experimental period lasted for 56 days. The results showed as follows: 1) the dry matter intake during days 1 to 56 of group A was significantly higher than that of group CON and group B (P<0.05). 2) There were no significant differences in milk yield, milk quality, feed conversion efficiency and nutrient apparent digestibility among all groups (P>0.05), overall, the group A showed better results. 3) On day 28 and day 56, the rumen acetic acid/propionic acid of group A and group B was significantly lower than that of group CON (P<0.05), and the group A was the lowest; there were no significant differences in pH and contents of ammonia nitrogen, acetic acid, propionic acid, butyric acid, valeric acid, isovaleric acid and total volatile fatty acid in rumen among all groups (P>0.05). 4) At the phylum and genus levels, there were no significant differences in the relative abundance of dominant microbiota in rumen among all groups (P>0.05). At KEGG2 level, the relative abundance of metabolism of other amino acids in rumen microbiota metabolic pathways of group B was significantly lower than that of group CON and group A (P<0.05); at KEGG3 level, the relative abundance of glycolysis/gluconeogenesis in rumen microbiota metabolic pathways of group B was significantly higher than that of group CON and group A (P<0.05). In conclusion, dietary supplemented with 0.2% Propionibacterium metabolites preparation can improve the rumen fermentation parameters, milk quality and body health of dairy cows.

Cite this article

LIU Xinbing , ZHEN Hu , LIU Jingjing , MA Xi , LIU Qiaolan , YAO Kun , LYU Jiaying , WANG Xun , YANG Yingkui , WANG Shuxiang , LI Shengli . Effects of Propionibacterium Metabolites Preparation on Performance, Milk Quality, Nutrient Apparent Digestibility, Rumen Fermentation Parameters and Rumen Microbiota of Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2026 , 38(2) : 1169 -1187 . DOI: 10.12418/CJAN2026.094

抗生素类生长促进剂是一种促进动物生长、提高养殖效率的抗菌药物类饲料添加剂[1],在过去的半个多世纪里,抗生素在养殖业常作为药物饲料添加剂被广泛使用。但是,近年来抗生素在动物生产中的滥用造成了许多不良影响,如致病菌耐药性增加、环境污染、抗生素在动物体内大量残留等,甚至严重威胁人类的健康[2]。2006年开始,欧盟率先全面停止了抗生素类生长促进剂的使用,随后多国相继效仿欧盟采取了禁抗措施[3]。2019年3月我国农业农村部发布公告称:自2020年1月1日起,退出除中药外的所有促生长类药物饲料添加剂品种生产及进口[4]。饲料禁抗时代的到来为动物生产带来了全新的挑战,动物替抗产品研究成为了行业关注的焦点。
丙酸杆菌于2013年收录到饲料添加剂目录中,许可应用于青贮饲料和牛饲料中,其代谢产物中富含丙酸、乙酸,还能发酵产生维生素B12、海藻糖和丙酸杆菌素等益生物质,具有促进双歧杆菌生长和抗炎症等益生特性,可以达到维护动物机体健康、提高生产性能的作用。有研究表明,丙酸盐可以为反刍动物提供32%~73%的葡萄糖需求。饲粮中添加丙酸盐可以缓解奶牛泌乳早期的能量负平衡[5],同时提高其产奶量等生产性能。Zhang等[6]研究发现,在泌乳早期给奶牛补充350 g/d的丙酸盐可以有效提高奶牛产奶量。Defrain等[7]研究报道,饲粮中添加丙酸盐对奶牛产奶量没有显著影响,但牛奶乳蛋白含量提高了3.16%~3.32%。Francisco等[8]研究发现,早期泌乳奶牛饲喂6×1010 CFU/d丙酸杆菌培养物后,产奶量没有显著变化,但牛奶乳蛋白含量增加了25%,非脂乳固体含量也有所提升。Lehloenya等[9]研究发现,饲粮中添加丙酸杆菌P16可以提高肉牛瘤胃丙酸盐含量,降低乙酸盐含量,导致乙丙比的改变,改善了瘤胃发酵模式。Zhang等[10]研究发现,泌乳早期奶牛饲粮中添加350 g/d丙酸钙后,瘤胃厚壁菌门的相对丰度降低,而拟杆菌门的相对丰度提高,导致厚壁菌门/拟杆菌门的比例降低。拟杆菌门相对丰度的增加有助于分解淀粉和纤维并从中获得能量,且有助于抑制炎症和减少促炎细胞因子的产生[11]。此外,Zhang等[10]研究还发现,泌乳早期奶牛饲粮中添加350 g/d丙酸钙提高了瘤胃球菌科的相对丰度。由于瘤胃球菌科可以促进纤维的代谢[12],提示补充丙酸钙有助于瘤胃纤维降解。还有研究表明,酮病奶牛产后瘤胃菌群组成改变,普雷沃氏菌属(Prevotella)、UBA1066等相对丰度异常,且菌群多样性恢复慢,导致丙酸合成持续下降;补充丙酸类似物可缓解酮病症状[13]。因此,具有安全、绿色、作用广泛等优点的丙酸杆菌代谢产物制剂成为了动物营养学与免疫学研究的焦点,也将会在这个替抗时代迎来新的市场契机。本试验旨在研究丙酸杆菌代谢产物制剂对奶牛生产性能及瘤胃菌群的影响,为其在奶牛饲粮中的应用提供数据参考,并为促进奶牛机体健康、提高生产性能策略的研究提供相关参考依据。

1 材料与方法

1.1 试验材料和试验动物

丙酸杆菌代谢产物制剂由某生物技术有限公司提供,其中主要成分挥发性脂肪酸钙盐≥50%(丙酸根≥25%),酵母菌≥5.0×10⁸ CFU/g,枯草芽孢杆菌≥2.0×109 CFU/g。
试验动物选择天津市宝坻区牛道口镇塘头村三元绿荷第二牧场场内自繁的健康泌乳期高产荷斯坦奶牛,体重、年龄相近,泌乳天数(66.9±7.8) d,日产奶量(38.42±0.70) kg。

1.2 试验设计和饲养管理

本研究已获得青海大学科学研究伦理审查委员会的批准(试验审批编号:SL-2023044),所有试验程序均依照伦理审查委员会指导方针进行。
将45头泌乳期高产荷斯坦奶牛按体重、胎次、泌乳天数和产奶量相近的原则进行配对,分为3个组,每组15个重复,每个重复1头。对照组(CON组)饲喂基础饲粮,试验组分别在基础饲粮中额外添加0.2%(A组)和0.4%(B组)的丙酸杆菌代谢产物制剂。预试期7 d,正试期56 d。奶牛采用全混合日粮(TMR)饲喂,精粗比为47∶53,参照我国《奶牛饲养标准》(NY/T 34—2004)配制,基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
苜蓿干草Alfalfa hay 12.80
燕麦草Oat grass 3.54
苜蓿青贮Alfalfa silage 3.87
全株玉米青贮Whole corn silage 26.32
压片玉米Steam-flaked corn 17.03
玉米Corn 12.32
全棉籽Whole cottonseed 5.46
膨化大豆Extruded soybean meal 4.45
麸皮Wheat bran 1.22
大豆皮Soybean hull 0.45
干酒糟及其可溶物DDGS 1.12
甜菜颗粒Beet pellet 7.67
甘蔗糖蜜Sugarcane molasses 1.14
石粉Limestone 0.31
小苏打NaHCO3 0.56
食盐NaCl 0.23
脂肪粉Fat powder 0.45
预混料Premix1) 1.06
合计Total 100.00
营养水平Nutrient levels2)
产奶净能NEL/(MJ/kg) 7.3
粗蛋白质CP 16.7
粗脂肪EE 5.1
粗灰粉Ash 6.7
中性洗涤纤维NDF 29.3
酸性洗涤纤维ADF 18.2
钙Ca 0.7
磷P 0.3

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Ca(H2PO4)2 1 000~2 000 mg,MgO 100~500 mg,ZnSO4 50~100 mg,CuSO4 10~50 mg,MnSO4 30~60 mg,Na2SeO3 0.1~0.5 mg,Ca(IO3)2 0.5~1.0 mg,VA 1 000~2 000 IU,VD3 100~500 IU,VE 50~100 IU。

2)产奶净能为计算值,参照NRC(2001);其余为实测值。NEL was a calculated value, referred to NRC (2001); while the others were measured values.

奶牛采用散栏饲养,自由采食,自由饮水。每天饲喂4次(08:00、10:30、16:00和17:30),机械挤奶3次(08:30、16:30和00:30)。

1.3 样品采集与测定

1.3.1 干物质采食量(daily dry matter intake,DMI)

试验期每天记录每头牛的给料量和剩料量,计算第1~7天、第8~14天、第15~21天、第22~28天、第29~35天、第36~42天、第43~49天、第50~56天和第1~56天干物质采食量。计算公式为:
干物质采食量(kg/d)=(给料量-剩料量)×干物质(DM)含量。

1.3.2 产奶量

记录第1天、第14天、第28天、第42天和第56天的产奶量,5次产奶量的平均值为日平均产奶量(average daily milk yield,ADMY)。

1.3.3 乳成分

测定第1天、第14天、第28天、第42天和第56天的乳成分,采用Delta自动奶牛生产性能测定仪(CombiScope FTIR 600HP,北京波通瑞华科学仪器有限公司)测定,测定指标包含乳脂率、乳蛋白率、乳糖率、尿素氮含量和体细胞数。

1.3.4 饲料转化效率

饲料转化效率计算公式如下:
4%标准乳(kg)=产奶量×[0.4+15×(乳脂率+乳蛋白率)/100];
饲料转化效率=4%标准乳/第1~56天干物质采食量。
其中,乳蛋白率和乳脂率均采用第56天的数据代入计算。

1.3.5 营养物质表观消化率

于正试期最后7 d,连续3 d收集各组的剩料和投料,并将其分别进行混匀。各取1 000 g,称重后及时在65 ℃烘48 h,测定初水分含量,并将所有样品粉碎过孔径0.85 mm样品筛,缩合均匀,四分法缩样,取约300 g再次粉碎,过孔径0.425 mm样品筛,保存备用。
于正试期最后7 d进行消化试验,每组选取5头牛,饲养管理方式、饲养环境和饲养条件不变,连续3 d收集粪便。粪样的采集采用直肠取粪法。每天挤奶后三点式采粪,并混合每天收集的粪样,然后按100 g粪样加10%硫酸20 mL,以免粪中氨氮损失。消化试验结束后,将每头牛3 d的粪样混合、缩样、冻存,用于营养物质[DM、有机物(OM)、粗蛋白质(CP)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、粗脂肪(EE)]表观消化率测定。饲粮钙、磷含量分别参照GB/T 6436—2018、GB/T 6437—2018的方法测定。粪便和饲粮中DM、粗灰分(Ash)、CP、NDF、ADF、EE和酸不溶灰分(AIA)含量分别参照GB/T 6435—2014、GB/T 6438—2007、GB/T 6432—2018、GB/T 20806—2022、NY/T 1459—2022、GB/T 6433—2006、GB/T 23742—2009的方法测定,OM含量通过DM含量减去Ash含量计算得出。用粪便和饲粮中的AIA含量计算营养物质表观消化率。计算公式如下:
营养物质表观消化率(%)=[1-(Ad×Nf)/(Af×Nd)]×100。
式中:AdAf分别为饲粮和粪便中AIA含量(g/kg);NdNf分别为饲粮和粪便中对应的该营养物质含量(g/kg)。

1.3.6 瘤胃发酵参数和瘤胃菌群

在第1天、第28天和第56天,每组随机选取5头牛,晨饲前通过口腔插管采集瘤胃液。弃掉最先采集的50 mL瘤胃液,随后取50 mL瘤胃液,4层纱布过滤,立即用pH计(PHS-3C,上海精密科学仪器有限公司)测定pH。随后将少量瘤胃液分装于2 mL离心管并置于液氮中冷冻,-80 ℃保存,待测瘤胃菌群;其余瘤胃液分装于10 mL离心管中,-20 ℃冷冻保存,并于4 ℃解冻,2 683×g条件下离心15 min,收集上清,测定挥发性脂肪酸(VFA)和氨态氮(NH3-N)含量。氨态氮含量用紫外可见分光光度计(TU-1810型,北京普析通用仪器有限公司)通过比色法测定[14],挥发性脂肪酸含量参照郭盼盼等[15]的方法通过气相色谱仪(Agilent 6890N型,北京安捷伦科技有限公司)测定。
使用十六烷基三甲基溴化铵法从瘤胃液样本中提取细菌DNA,通过1.0%琼脂糖凝胶电泳评估DNA的质量,PCR采用25 μL扩增体系。用QIAquick PCR纯化试剂盒(德国Qiagen公司)纯化回收,瘤胃液样品送至北京奥维森基因科技有限公司分析,测序平台为Mixed PE 300。测序得到的原始数据进行拼接、过滤,得到有效数据,然后基于有效数据通过DADA2进行降噪,并过滤掉相对丰度小于5的序列,从而获得最终的瘤胃液扩增子序列变体(amplicon sequence variants,ASVs)。采用QIIME2的classify-sklearn算法对每个ASVs使用预先训练好的Naive Bayes分类器进行物种注释。通过QIIME2 1.9.0计算Alpha多样性,采用主坐标分析(PCoA)各试验组细菌群落的差异显著性。根据ASVs注释结果和各样品特征表获得门、属水平相对丰度表。之后采用PICRUSt 2方法研究不同水平丙酸杆菌代谢产物制剂对奶牛瘤胃微生物群代谢途径及功能的预测。

1.4 数据分析

使用SPSS 21.0软件进行单因素方差分析,并用LSD法进行组间差异分析,P<0.05表示显著差异,P>0.05表示差异不显著,结果均以平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 丙酸杆菌代谢产物制剂对奶牛干物质采食量的影响

表2可知,第1~7天,A组和B组干物质采食量显著高于CON组(P<0.05);第8~14天和第15~21天,A组和B组干物质采食量显著高于CON组(P<0.05),且A组干物质采食量显著高于B组(P<0.05);第22~28天、第29~35天、第36~42天、第43~49天和第50~56天,A组干物质采食量显著高于B组和CON组(P<0.05);第1~56天,A组和B组干物质采食量显著高于CON组(P<0.05),且A组干物质采食量显著高于B组(P<0.05)。
表2 丙酸杆菌代谢产物制剂对奶牛干物质采食量的影响

Table 2 Effects of Propionibacterium metabolites preparation on dry matter intake of dairy cowskg/d

项目
Items
组别Group SEM P
P-value
CON A B
第1~7天Days 1 to 7 25.41b 26.79a 26.65a 0.294 0.002
第8~14天Days 8 to 14 25.08c 27.10a 26.57b 0.189 <0.001
第15~21天Days 15 to 21 25.82c 27.96a 26.82b 0.261 <0.001
第22~28天Days 22 to 28 26.23b 28.06a 26.17b 0.268 <0.001
第29~35天Days 29 to 35 25.51b 28.35a 26.33b 0.358 <0.001
第36~42天Days 36 to 42 25.31b 27.96a 25.61b 0.252 <0.001
第43~49天Days 43 to 49 25.13b 28.09a 25.54b 0.171 <0.001
第50~56天Days 50 to 56 25.05b 27.60a 25.27b 0.283 <0.001
第1~56天Days 1 to 56 25.44c 27.74a 26.12b 0.129 <0.001

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 丙酸杆菌代谢产物制剂对奶牛产奶量的影响

表3可知,第1天、第14天、第28天、第42天和第56天,各组之间产奶量均无显著差异(P>0.05);其中,第14天,A组产奶量较CON组提高了7.13%,B组产奶量较CON组提高了3.05%;第28天,A组产奶量较CON组提高了2.81%,B组产奶量较CON组提高了0.31%;第42天,A组产奶量较CON组提高了2.94%,B组产奶量较CON组提高了2.23%;第56天,A组产奶量较CON组提高了5.81%,B组产奶量较于CON组提高了4.73%。各组之间ADMY均无显著差异(P>0.05);其中,A组ADMY较CON组提高了5.05%,B组ADMY较CON组提高了3.20%。
表3 丙酸杆菌代谢产物制剂对奶牛产奶量的影响

Table 3 Effects of Propionibacterium metabolites preparation on milk yield of dairy cows kg/d

项目
Items
组别Group SEM P
P-value
CON A B
产奶量Milk yield
第1天Day 1 50.89 50.56 50.54 2.491 0.290
第14天Day 14 49.43 52.96 50.94 2.902 0.382
第28天Day 28 48.69 50.06 48.84 2.603 0.705
第42天Day 42 45.25 46.58 46.26 3.029 0.525
第56天Day 56 42.53 45.00 44.54 2.678 0.311
日平均产奶量ADMY 46.32 48.66 47.80 2.119 0.371

2.3 丙酸杆菌代谢产物制剂对奶牛乳品质的影响

表4可知,第1天、第14天、第28天、第42天和第56天,各组之间乳脂率、乳蛋白率、乳糖率、体细胞数和尿素氮含量均无显著差异(P>0.05)。其中,第14天、第28天、第42天和第56天,A组乳脂率较CON组分别提高了3.21%、5.03%、3.54%和5.09%;第28天、第42天和第56天,B组乳脂率较CON组分别提高了1.48%、1.47%和4.29%;第14天、第28天、第42天和第56天,A组乳蛋白率较CON组分别提高了1.65%、5.40%、0.31%和2.05%,B组乳蛋白率较CON组分别提高了6.27%、6.67%、2.48%和0.29%。第1天,A组和B组牛奶体细胞数均高于CON组;第14天,A组牛奶体细胞数较CON组降低了24.14%,B组牛奶体细胞数较CON组降低了21.12%;第56天,A组牛奶体细胞数较CON组降低了37.58%,B组牛奶体细胞数较CON组降低了21.21%。
表4 丙酸杆菌代谢产物制剂对奶牛乳品质的影响

Table 4 Effects of Propionibacterium metabolites preparation on milk quality of dairy cows

项目
Items
组别Group SEM P
P-value
CON A B


乳脂率
Milk fat percentage/%
第1天Day 1 3.60 3.60 3.58 0.183 0.323
第14天Day 14 3.74 3.86 3.51 0.233 0.429
第28天Day 28 3.38 3.55 3.43 0.179 0.373
第42天Day 42 3.39 3.51 3.44 0.311 0.124
第56天Day 56 3.73 3.92 3.89 0.181 0.251


乳蛋白率
Milk protein percentage/%
第1天Day 1 3.09 3.10 3.12 0.073 0.132
第14天Day 14 3.03 3.08 3.22 0.102 0.464
第28天Day 28 3.15 3.32 3.36 0.088 0.097
第42天Day 42 3.22 3.23 3.30 0.071 0.573
第56天Day 56 3.41 3.48 3.42 0.087 0.269


乳糖率
Lactose percentage/%
第1天Day 1 5.20 5.17 5.19 0.051 0.438
第14天Day 14 5.24 5.15 5.23 0.063 0.655
第28天Day 28 5.25 5.20 5.27 0.059 0.184
第42天Day 42 5.25 5.22 5.31 0.073 0.644
第56天Day 56 5.28 5.17 5.22 0.051 0.843


体细胞数
Somatic cell count/
(×104个/mL)
第1天Day 1 3.21 5.70 9.53 4.741 0.710
第14天Day 14 23.20 17.60 18.30 6.381 0.336
第28天Day 28 23.90 25.80 25.00 8.491 0.252
第42天Day 42 27.10 29.55 24.55 8.511 0.172
第56天Day 56 27.01 16.86 21.28 16.260 0.564


尿素氮
Urea nitrogen/(mg/dL)
第1天Day 1 12.09 10.39 11.01 0.492 0.898
第14天Day 14 12.45 12.93 11.97 1.371 0.405
第28天Day 28 12.36 10.14 10.50 1.409 0.281
第42天Day 42 12.07 11.34 10.86 1.471 0.455
第56天Day 56 13.13 13.38 12.70 0.557 0.563

2.4 丙酸杆菌代谢产物制剂对奶牛饲料转化效率的影响

表5可知,各组之间奶牛饲料转化效率无显著差异(P>0.05)。相较于CON组,B组饲料转化效率有所升高,A组饲料转化效率有所下降。
表5 丙酸杆菌代谢产物制剂对奶牛饲料转化效率的影响

Table 5 Effects of Propionibacterium metabolites preparation on feed conversion efficiency of dairy cows

项目
Items
组别Group SEM P
P-value
CON A B
4%标准乳4%FCM/kg 68.15 73.50 71.53 1.840 0.126
饲料转化效率Feed conversion efficiency 2.68 2.65 2.74 0.028 0.077

2.5 丙酸杆菌代谢产物制剂对奶牛营养物质表观消化率的影响

表6可知,各组之间奶牛DM、CP、NDF、ADF、EE和OM表观消化率较均无显著差异(P>0.05)。其中,A组DM、CP、ADF、EE、OM表观消化率较CON组均有所升高,B组DM、CP、ADF和OM表观消化率较CON组也有所升高;A组DM、CP、NDF、ADF、EE和OM表观消化率均略高于B组。
表6 丙酸杆菌代谢产物制剂对奶牛营养物质表观消化率的影响

Table 6 Effects of Propionibacterium metabolites preparation on nutrient apparent digestibility of dairy cows %

项目
Items
组别Group SEM P
P-value
CON A B
干物质DM 61.79 67.08 64.34 3.972 0.416
粗蛋白质CP 65.77 69.74 67.84 3.989 0.626
中性洗涤纤维NDF 44.72 44.05 43.43 1.739 0.772
酸性洗涤纤维ADF 30.76 35.54 32.95 1.437 0.644
粗脂肪EE 70.93 73.44 70.15 1.852 0.203
有机物OM 63.22 68.65 66.00 4.073 0.458

2.6 丙酸杆菌代谢产物制剂对奶牛瘤胃发酵参数的影响

表7可知,第1天、第28天和第56天,各组之间瘤胃pH及氨态氮、乙酸、丙酸、丁酸、戊酸、异戊酸、总挥发性脂肪酸含量均无显著差异(P>0.05)。第1天,A组瘤胃异丁酸含量显著低于CON组(P<0.05);第28天和第56天,A组和B组瘤胃乙丙比均显著低于CON组(P<0.05),其中A组最低。
表7 丙酸杆菌代谢产物制剂对奶牛瘤胃发酵参数的影响

Table 7 Effects of Propionibacterium metabolites preparation on rumen fermentation parameters of dairy cows

项目
Items
组别Group SEM P
P-value
CON A B


pH
第1天Day 1 6.62 6.71 6.79 0.172 0.255
第28天Day 28 6.71 6.55 6.35 0.311 0.613
第56天Day 56 6.31 6.70 6.62 0.221 0.473


氨态氮
NH3-N/(mg/dL)
第1天Day 1 7.24 7.83 7.95 2.063 0.585
第28天Day 28 8.35 8.37 8.47 0.819 0.841
第56天Day 56 8.35 8.58 8.31 0.801 0.797


乙酸
Acetic acid/(mmol/L)
第1天Day 1 53.53 52.43 51.69 4.742 0.651
第28天Day 28 49.69 48.42 50.50 8.203 0.968
第56天Day 56 49.75 45.35 46.26 6.681 0.793


丙酸
Propionic acid/(mmol/L)
第1天Day 1 31.32 32.42 39.16 7.769 0.335
第28天Day 28 18.20 36.32 36.69 7.362 0.075
第56天Day 56 26.07 32.60 32.62 4.627 0.333


异丁酸
Isobutyric acid/(mmol/L)
第1天Day 1 0.52a 0.45b 0.47ab 0.023 0.030
第28天Day 28 0.39 0.40 0.44 0.032 0.341
第56天Day 56 0.45 0.42 0.45 0.012 0.171


丁酸
Butyric acid/(mmol/L)
第1天Day 1 10.23 9.93 9.59 0.922 0.238
第28天Day 28 13.78 8.65 10.47 2.711 0.659
第56天Day 56 10.68 9.20 8.73 2.393 0.712


异戊酸
Isovaleric acid/(mmol/L)
第1天Day 1 1.31 1.42 1.25 0.133 0.967
第28天Day 28 1.38 1.27 1.14 0.113 0.179
第56天Day 56 1.34 1.43 1.13 0.213 0.416


戊酸
Valeric acid/(mmol/L)
第1天Day 1 1.13 1.00 1.09 0.104 0.236
第28天Day 28 1.12 1.10 1.11 0.148 0.989
第56天Day 56 1.05 0.98 0.99 0.193 0.937


乙丙比
Acetic acid/propionic acid
第1天Day 1 1.84 1.74 1.33 0.382 0.380
第28天Day 28 2.73a 1.35b 1.39b 0.073 <0.001
第56天Day 56 1.96a 1.40b 1.42b 0.169 0.038


总挥发性脂肪酸
TVFA/(mmol/L)
第1天Day 1 98.05 97.64 111.09 13.022 0.388
第28天Day 28 84.57 96.17 100.35 17.528 0.666
第56天Day 56 89.34 89.98 90.19 13.348 0.998

2.7 丙酸杆菌代谢产物制剂对奶牛瘤胃菌群的影响

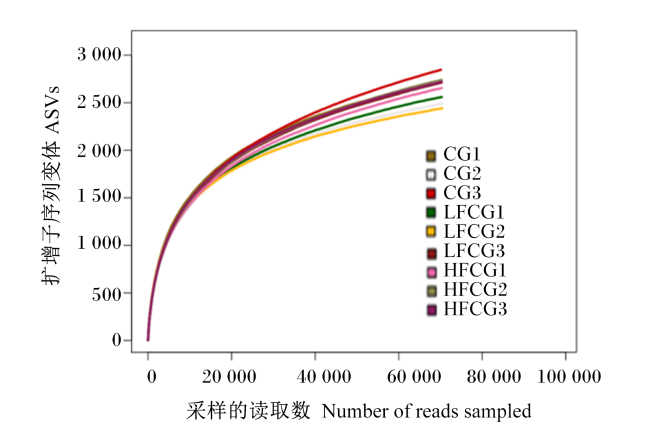
图1可知,随着测序深度的增加,各组瘤胃微生物稀释曲线均趋于平滑,表明测序程度合理,可以覆盖样本中绝大多数微生物的真实情况,能够真实反映出瘤胃菌群的情况。
图1 瘤胃微生物稀释曲线

CG1、CG2和CG3分别代表CON组第1天、第28天和第56天;LFCG1、LFCG2和LFCG3分别代表A组第1天、第28天和第56天;HFCG1、HFCG2和HFCG3分别代表B组第1天、第28天和第56天。下图同。

Fig.1 Rumen microbiota dilution curve

CG1, CG2 and CG3 represented group CON at day 1, day 28 and day 56, respectively; LFCG1, LFCG2 and LFCG3 represented group A at day 1, day 28 and day 56, respectively; HFCG1, HFCG2 and HFCG3 represented group B at day 1, day 28 and day 56, respectively. The same as below.

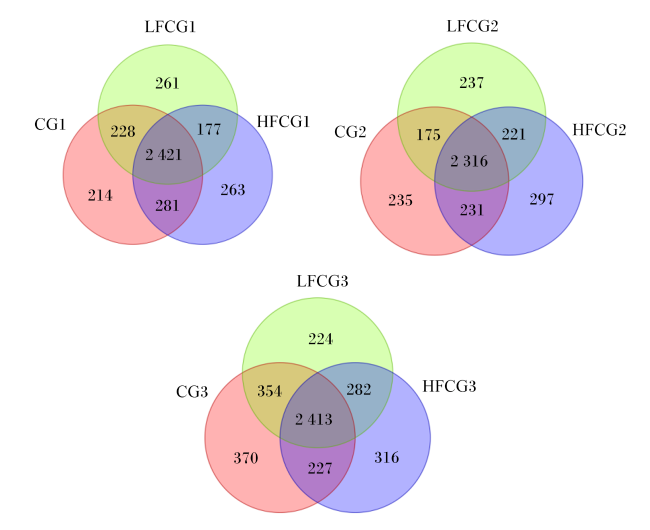
图2可知,第1天,3组奶牛瘤胃液共鉴定出8 687种ASVs,其中共有ASVs数目为2 421种,占总数的27.87%;CON组、A组和B组的ASVs数目分别为3 144、3 087和3 142种,独占数目分别为214、261和263种。第28天,3组奶牛瘤胃液共鉴定出8 344种ASVs,其中共有ASVs数目为2 316种,占总数的27.76%;CON组、A组和B组的ASVs数目分别为2 957、2 949和3 065种,独占数目分别为235、237和297种。第56天,3组奶牛瘤胃液共鉴定出9 012种ASVs,其中共有ASVs数目为2 413种,占总数的26.78%;CON组、A组和B组的ASVs数目分别为3 364、3 273和3 238种,独占数目分别为370、224和316种。
图2 瘤胃液中ASVs的韦恩图

Fig.2 Venn diagrams of ASVs in rumen fluid

表8可知,通过Alpha多样性分析,各组之间奶牛瘤胃微生物的Observed species指数、Chao1指数、Shannon指数、Simpson指数和覆盖率均无显著差异(P>0.05)。
表8 Alpha多样性

Table 8 Alpha diversity

项目
Items
组别Group SEM P
P-value
CON A B


Observed species指数
Observed species index
第1天Day 1 2 593.80 2 605.27 2 630.10 150.967 0.552
第28天Day 28 2 524.93 2 623.57 2 771.97 156.488 0.346
第56天Day 56 2 991.93 2 716.53 2 696.30 214.651 0.742


Chao1指数
Chao1 index
第1天Day 1 3 144.94 3 216.11 3 187.13 191.191 0.576
第28天Day 28 3 063.08 3 149.47 3 498.90 228.101 0.847
第56天Day 56 3 662.18 3 344.31 3 202.77 272.103 0.921


Shannon指数
Shannon index
第1天Day 1 8.82 8.76 8.69 0.359 0.104
第28天Day 28 8.75 9.11 8.75 0.181 0.689
第56天Day 56 8.93 8.70 8.77 0.272 0.743


Simpson指数
Simpson index
第1天Day 1 0.99 0.99 0.99 0.012 0.943
第28天Day 28 0.99 0.99 0.99 0.013 0.923
第56天Day 56 0.99 0.99 0.99 0.012 0.943


覆盖率
Coverage/%
第1天Day 1 99.00 99.00 99.00 0.000 1.000
第28天Day 28 99.00 99.00 99.00 0.000 1.000
第56天Day 56 99.00 99.00 99.00 0.000 1.000
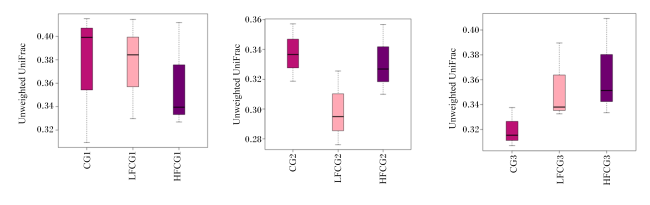
通过计算Weighted UniFrac与Unweighted UniFrac样本距离,计算并绘制箱形图,由图3可知,第1天、第28天和第56天,与CON组相比,A组和B组瘤胃菌群Beta多样性存在一定差异。
图3 Beta多样性箱型图

Fig.3 Boxplots of Beta diversity

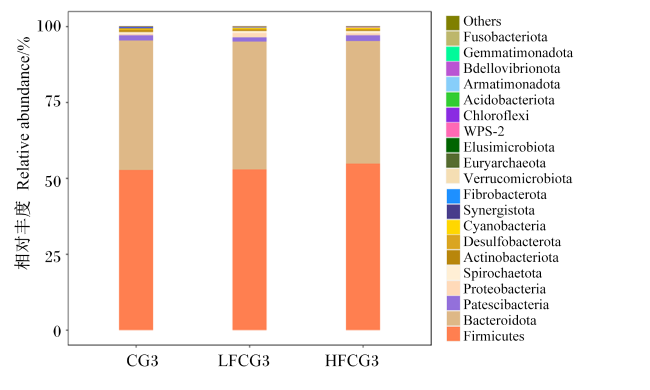
表9图4可知,在门水平上,各组瘤胃优势菌群为厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota),厚壁菌门相对丰度最高,其次是拟杆菌门;各组之间瘤胃厚壁菌门、拟杆菌门等相对丰度均无显著差异(P>0.05)。
表9 门水平瘤胃菌群相对丰度(前10)

Table 9 Relative abundances of rumen microbiota at phylum level (top 10) %

项目
Items
组别Group SEM P
P-value
CON A B
厚壁菌门Firmicutes 52.78 53.03 54.86 8.579 0.584
拟杆菌门Bacteroidota 42.66 41.98 40.34 8.322 0.704
髌骨细菌门Patescibacteria 1.77 1.53 2.05 0.322 0.984
螺旋菌门Spirochaetota 0.48 0.53 0.75 0.323 0.744
变形菌门Proteobacteria 0.58 1.44 0.60 0.591 0.966
放线菌门Actinobacteriota 0.52 0.48 0.38 0.149 0.575
热脱硫杆菌门Desulfobacterota 0.51 0.37 0.27 0.141 0.896
蓝细菌门Cyanobacteria 0.22 0.27 0.31 0.118 0.476
互养菌门Synergistota 0.13 0.10 0.08 0.041 0.858
疣微菌门Verrucomicrobiota 0.05 0.08 0.10 0.059 0.826
图4 门水平瘤胃菌群相对丰度柱状图(前20)

Others:其他;Fusobacteriota:梭杆菌门;Gemmatimonadota:芽单孢菌门;Bdellovibrionota:风毛菊菌门;Armatimonadota:装甲菌门;Acidobacteriota:酸杆菌门;Chloroflexi:绿弯菌门;Elusimicrobiota:迷踪菌门;Euryarchaeota:古菌门;Verrucomicrobiota:疣微菌门;Fibrobacterota:纤维杆菌门;Synergistota:互养菌门;Cyanobacteria:蓝细菌门;Desulfobacterota:热脱硫菌门;Actinobacteriota:放线菌门;Spirochaetota:螺旋菌门;Proteobacteria:变形菌门;Patescibacteria:髌骨细菌门;Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门。

Fig.4 Histogram of relative abundances of rumen microbiota at phylum level (top 20)

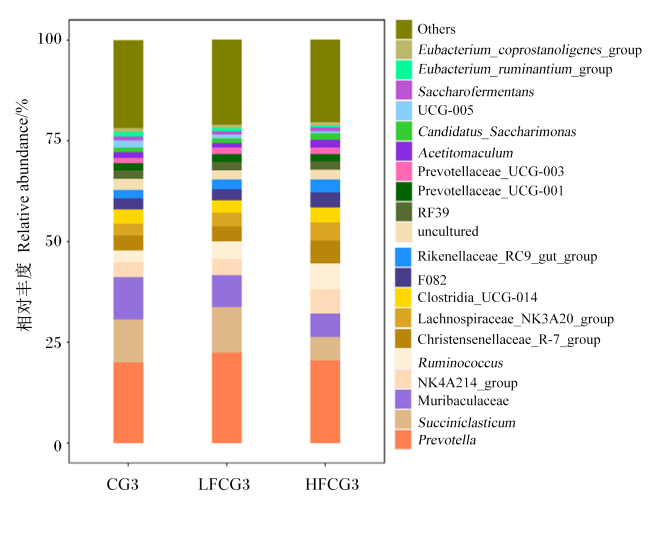
表10图5可知,在属水平上,各组瘤胃优势菌群为普雷沃氏菌属(Prevotella)、解琥珀酸菌属(Succiniclasticum)、鼠杆菌科(Muribaculaceae)等,普雷沃氏菌属相对丰度最高,其次是琥珀酸菌属、鼠杆菌科等;各组之间瘤胃普雷沃氏菌属、解琥珀酸菌属等相对丰度均无显著差异(P>0.05)。
表10 属水平瘤胃菌群相对丰度(前10)

Table 10 Relative abundances of rumen microbiota at genus level (top 10) %

项目
Items
组别Group SEM P
P-value
CON A B
普雷沃氏菌属Prevotella 20.14 22.44 20.54 8.969 0.324
解琥珀酸菌属Succiniclasticum 10.58 11.30 5.85 2.419 0.735
鼠杆菌科Muribaculaceae 10.54 7.93 5.72 1.651 0.578
NK4A214群NK4A214_group 3.76 4.17 6.04 1.803 0.871
瘤胃球菌属Ruminococcus 2.75 4.23 6.55 2.268 0.689
克里斯滕森菌科R-7群Christensenellaceae_R-7_group 3.85 3.71 5.52 1.411 0.684
毛螺菌科NK3A20群Lachnospiraceae_NK3A20_group 2.77 3.42 4.53 1.982 0.440
梭菌目UCG-014 Clostridia_UCG-014 3.65 3.17 3.70 0.679 0.764
F082 2.64 2.60 3.70 1.044 0.565
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 2.22 2.39 3.35 0.617 0.402
图5 属水平瘤胃菌群相对丰度柱状图(前20)

Others:其他;Eubacterium_coprostanoligenes_group:粪固醇真杆菌属群;Eubacterium_ruminantium_group:反刍真杆菌属群;Saccharofermentans:糖发酵菌属;Candidatus_Saccharimonas:候选糖单胞菌属;Acetitomaculum:产乙酸小杆菌属;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Prevotellaceae_UCG-001:普雷沃氏菌科UCG-001;uncultured:未定义;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Clostridia_UCG-014:梭菌目UCG-014;Lachnospiraceae_NK3A20_group:毛螺菌科NK3A20群;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Ruminococcus:瘤胃球菌属;NK4A214_group:NK4A214群;Muribaculaceae:鼠杆菌科;Succiniclasticum:解琥珀酸菌属;Prevotella:普雷沃氏菌属。

Fig.5 Histogram of relative abundances of rumen microbiota at genus level (top 20)

2.8 瘤胃菌群代谢途径及功能预测

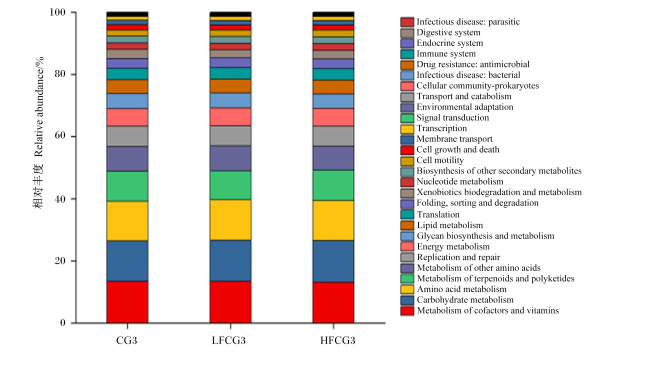
本研究采用PICRUSt2来预测瘤胃菌群的代谢途径及功能,由表11图6可知,在KEGG2水平,3组碳水化合物代谢、辅助因子和维生素的代谢及氨基酸代谢相对丰度较高,但均无显著差异(P>0.05);B组其他氨基酸代谢相对丰度显著低于CON组和A组(P<0.05)。
表11 KEGG2水平注释瘤胃菌群代谢途径相对丰度

Table 11 Annotated relative abundances of rumen microbiota metabolites pathways at KEGG2 levels %

项目
Items
组别Group SEM P
P-value
CON A B
碳水化合物代谢Carbohydrate metabolism 13.00 13.19 13.36 0.142 0.107
脂质代谢Lipid metabolism 4.54 4.49 4.58 0.179 0.884
辅助因子和维生素的代谢
Metabolism of cofactors and vitamins
13.36 13.44 13.09 0.367 0.637
能量代谢Energy metabolism 5.70 5.71 5.66 0.071 0.700
核苷酸代谢Nucleotide metabolism 2.14 2.15 2.13 0.033 0.750
氨基酸代谢Amino acid metabolism 12.79 12.93 12.94 0.139 0.524
萜类和多酮类的代谢
Metabolism of terpenoids and polyketides
9.67 9.38 9.82 0.408 0.585
次级代谢产物的生物合成
Biosynthesis of other secondary metabolites
2.10 2.14 2.20 0.131 0.737
口服抗生素耐药性Drug resistance: antimicrobial 0.11 0.10 0.11 0.021 0.877
外源性物质生物降解和代谢
Xenobiotics biodegradation and metabolism
3.00 2.64 2.77 0.147 0.138
其他氨基酸代谢Metabolism of other amino acids 7.94a 7.99a 7.65b 0.089 0.041
聚糖的生物合成和代谢
Glycan biosynthesis and metabolism
4.74 4.80 4.57 0.441 0.374
图6 KEGG2水平注释瘤胃菌群代谢途径相对丰度柱状图

Infectious disease: parasitic:传染病:寄生虫;Digestive system:消化系统;Endocrine system:内分泌系统;Immune system:免疫系统;Drug resistance: antimicrobial:耐药性:抗菌;Infectious disease: bacterial:传染病:细菌;Cellular community-prokaryotes:细胞群落-原核生物;Transport and catabolism:运输和分解代谢;Environmental adaptation:环境适应;Signal transduction:信号转导;Transcription:转录;Membrane transport:膜运输;Cell growth and death:细胞生长与死亡;Cell motility:细胞活性;Biosynthesis of other secondary metabolites:次级代谢产物的生物合成;Nucleotide metabolism:核苷酸代谢;Xenobiotics biodegradation and metabolism:外源性物质生物降解和代谢;Folding, sorting and degradation:折叠、分类和降解;Translation:翻译;Lipid metabolism:脂质代谢;Glycan biosynthesis and metabolism:聚糖的生物合成与代谢;Energy metabolism:能量代谢;Replication and repair:复制和修复;Metabolism of other amino acids:其他氨基酸代谢;Metabolism of terpenoids and polyketides:萜类和多酮类的代谢;Amino acid metabolism:氨基酸代谢;Carbohydrate metabolism:碳水化合物代谢;Metabolism of cofactors and vitamins:辅助因子和维生素的代谢。

Fig.6 Histogram of annotated relative abundances of rumen microbiota metabolites pathways at KEGG2 levels

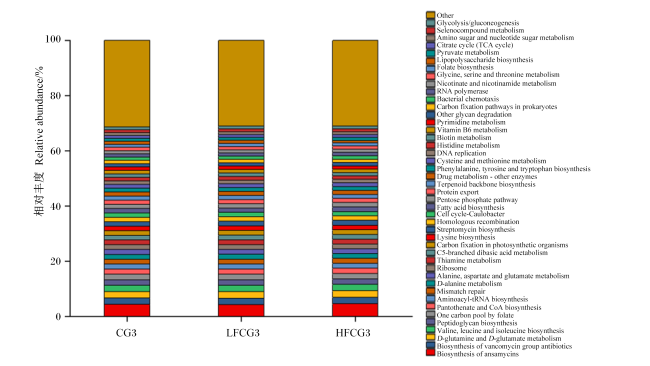
表12图7可知,在KEGG3水平,3组瘤胃菌群代谢途径主要富集于安沙霉素类的生物合成,将相对丰度较高(>1%)的代谢途径进行分析,发现有且只有糖酵解/糖异生相对丰度表现出显著差异,即B组糖酵解/糖异生相对丰度显著高于CON组和A组(P<0.05)。
表12 KEGG3水平注释瘤胃菌群差异代谢途径相对丰度

Table 12 Annotated relative abundances of rumen microbiota differential metabolites pathways at KEGG3 level %

项目
Item
组别Group SEM P
P-value
CON A B
糖酵解/糖异生Glycolysis/gluconeogenesis 1.02b 1.02b 1.06a 0.011 0.016
图7 KEGG3水平注释瘤胃菌群代谢途径相对丰度柱状图

Other:其他;Glycolysis/gluconeogenesis:糖酵解/糖异生;Selenocompound metabolism:有机硒新陈代谢;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖的代谢;Citrate cycle (TCA cycle):柠檬酸循环(TCA循环);Pyruvate metabolism:丙酮酸代谢;Lipopolysaccharide biosynthesis:脂多糖生物合成;Folate biosynthesis:叶酸生物合成;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸的代谢;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;RNA polymerase:RNA聚合酶;Bacterial chemotaxis:细菌趋化性;Carbon fixation pathways in prokaryotes:原核生物的碳固定途径;Other glycan degradation:其他聚糖降解;Pyrimidine metabolism:嘧啶代谢;Vitamin B6 metabolism:维生素B6代谢;Biotin metabolism:生物素代谢;Histidine metabolism:组氨酸代谢;DNA replication:DNA复制;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Phenylalanine, tyrosine and tryptophan biosynthesis:苯丙氨酸、酪氨酸和色氨酸的生物合成;Drug metabolism - other enzymes:药物代谢-其他酶;Terpenoid backbone biosynthesis:萜类骨架生物合成;Protein export:蛋白质的出口;Pentose phosphate pathway:戊糖磷酸途径;Fatty acid biosynthesis:脂肪酸生物合成;Cell cycle-Caulobacter:细胞周期-茎状杆菌;Homologous recombination:同源重组;Streptomycin biosynthesis:链霉素生物合成;Lysine biosynthesis:赖氨酸生物合成;Carbon fixation in photosynthetic organisms:光合生物中的碳固定;C5-branched dibasic acid metabolism:C5-支链二元酸代谢;Thiamine metabolism:硫胺素新陈代谢;Ribosome:核糖体;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;D-alanine metabolism:D-丙氨酸代谢;Mismatch repair:错配修复;Aminoacyl-tRNA biosynthesis:氨酰生物合成;Pantothenate and CoA biosynthesis:泛酸和辅酶A的生物合成;One carbon pool by folate:碳库-叶酸;Peptidoglycan biosynthesis:肽聚糖生物合成;Valine, leucine and isoleucine biosynthesis:缬氨酸、亮氨酸和异亮氨酸的生物合成;D-glutamine and D-glutamate metabolism:D-谷氨酰胺和D-谷氨酸代谢;Biosynthesis of vancomycin group antibiotics:万古霉素类抗生素的生物合成;Biosynthesis of ansamycins:安沙霉素类的生物合成。

Fig.7 Histogram of annotated relative abundances of rumen microbiota metabolites pathways at KEGG3 levels

3 讨论

3.1 丙酸杆菌代谢产物制剂对奶牛干物质采食量的影响

奶牛的采食量反映动物营养的摄入量,影响着奶牛后续的产奶量和乳品质。本试验所采用的丙酸杆菌代谢产物制剂主要成分包含丙酸根、酵母菌和枯草芽孢杆菌。但有许多研究表明,饲粮中添加一定比例的丙酸盐或丙酸杆菌对泌乳期奶牛采食量无显著影响[16-18]。本试验结果显示,A组和B组第1~56天的干物质采食量均显著高于CON组,猜测主要是由于丙酸杆菌代谢产物制剂中酵母菌作用导致。李传凤等[19]通过向奶牛饲粮中添加不同比例的酵母菌培养物,探究其对夏季奶牛生产性能和血清生化指标的影响,结果表明添加酵母菌培养物能显著增加奶牛采食量;Zhang等[20]研究也表明,饲粮中补充活酵母能显著提高奶牛的干物质采食量;Lamontagne等[21]直接在奶牛饲粮中添加含枯草芽孢杆菌和地衣芽孢杆菌的微生物制剂,结果表明并不会影响奶牛的干物质采食量;Jia等[22]在奶牛饲粮中添加一定量的枯草芽孢杆菌,结果显示有提高奶牛干物质采食量的趋势。
本试验结果还显示,A组第1~56天的干物质采食量显著高于CON组和B组。陈伟松等[23]研究发现,荷斯坦犊牛饲粮分别添加1、2、4 g活性干酵母,添加2 g活性干酵母组的采食量增加最多。这与本试验结果一致,推测酵母菌添加量存在某个最优区间,过少或者过量添加均不能达到最佳效果,具体作用机制还有待进一步研究。

3.2 丙酸杆菌代谢产物制剂对奶牛产奶量和乳品质的影响

产奶量是衡量奶牛生产性能的关键指标,其高低影响着奶牛的饲料转化效率。本试验结果表明,饲粮中添加丙酸杆菌代谢产物制剂提升了奶牛ADMY,且A组的提升幅度最大。有众多研究表明,单一添加丙酸盐、丙酸杆菌、酵母菌、枯草芽孢杆菌对奶牛产奶量均有显著影响[6,24-26],这与本研究结果有所差异,推测是丙酸杆菌代谢产物制剂微生物活性以及活菌数目较低导致。赵珺[27]向奶牛饲粮中添加不同水平的酵母培养物和枯草芽孢杆菌混合制剂,结果发现奶牛的产奶量随着其添加水平增加逐步提升,这与本试验A组提升幅度最大的结果不同,推测可能是菌种种属不同以及饲粮组成不同,本试验饲粮中某些成分与本试验所用酵母菌的种类产生了交互影响。
牛奶的乳蛋白率、乳脂率、乳糖率反映着牛奶的营养价值以及乳品质的高低[28]。本试验研究结果表明,丙酸杆菌代谢产物制剂能够增加第56天的乳脂率、乳蛋白率,且A组的提升幅度最大;降低第56天的乳糖率,提示A组的奶品质最优。有研究显示,丙酸杆菌或丙酸盐对长期牛乳成分的影响并不显著[8,29],故推测对乳成分产生主要作用的是酵母菌以及枯草芽孢杆菌。赵珺[27]研究表明,饲粮中添加1.0%、1.2%、1.5%的酵母培养物和枯草芽孢杆菌混合制剂,乳脂率有轻微上升趋势,且添加水平为1.2%时上升幅度最大,这与本试验结果一致。郭园[30]研究发现,饲粮中添加复合酵母菌能提高奶牛乳蛋白率,降低乳糖率,与本试验结果一致。Sun等[31]研究发现,奶牛饲粮中添加不同活菌数的枯草芽孢杆菌可提高乳脂率和乳蛋白率,且随着活菌数增加而增加。这与本研究乳脂率和乳蛋白率略有提升且A组提升增幅最大的结果不一致,推测是枯草芽孢杆菌活菌数太低并且饲粮成分不同导致。仲伟光等[32]研究表明,酵母菌能提升奶牛乳蛋白率和乳脂率的同时降低乳糖率,这与本研究乳糖率总体降低的结果一致。
牛奶体细胞数可以反映出奶牛的炎症状况,过高的体细胞数不仅提示乳房炎的发生,同时也会导致牛奶口感发生变化[33]。本研究结果显示,第56天时A组和B组相较于CON组体细胞数均有所下降,且A组体细胞数下降幅度最大,提示A组对奶牛较健康。仲伟光等[32]研究还表明,复合酵母菌培养物能使奶牛牛奶体细胞数下降21.81%,这与本研究体细胞数下降的结果一致。恩和道力格尔[34]向奶牛饲粮中分别添加酵母菌制剂和枯草芽孢杆菌制剂,结果显示添加枯草芽孢杆菌制剂组的牛奶体细胞数显著低于对照组,与本研究的下降趋势一致但幅度不同,推测原因是枯草芽孢杆菌的添加量不同。Zhang等[6]向奶牛饲粮中添加不同水平的丙酸钙,结果发现添加丙酸钙组奶牛牛奶体细胞数呈二次曲线下降,与本研究的结果一致。

3.3 丙酸杆菌代谢产物制剂对奶牛饲料转化效率的影响

饲料转化效率的高低关乎着经济效益的高低,是奶牛养殖产业发展的关键。本试验结果表明,饲粮中添加不同水平丙酸杆菌代谢产物制剂对奶牛饲料转化效率没有显著影响,但B组相较于CON组有所升高。有许多研究表明,向奶牛饲粮中单独添加一定水平的丙酸杆菌或是单独添加枯草芽孢杆菌,亦或是添加芽孢杆菌和酵母菌混合制剂,均有提升饲料转化效率的作用[24,26,35],这与本试验结果不同,猜测原因是本试验所用丙酸杆菌代谢产物制剂添加量太少,导致这些菌种或者菌代谢产物发挥作用效果有限。此外值得注意的是,本试验结果显示虽然丙酸杆菌代谢产物制剂对于饲料转化效率无显著影响,但相较于CON组,A组有所下降,分析其中原因可能是A组能量供给模式更偏向于提升乳品质的方向,而能量用于乳产量与乳品质的消耗转化比例并不一致,结合4%标准乳计算公式中的乳脂率和乳蛋白率的权重相对实际产奶量偏低,最终综合导致A组饲料转化效率的轻微下降。

3.4 丙酸杆菌代谢产物制剂对奶牛营养物质表观消化率的影响

瘤胃是反刍动物对饲粮进行消化的主要场所,其中瘤胃菌群发挥着重要作用,因此奶牛营养物质表观消化率是反映瘤胃消化能力的重要指标[36]。本试验结果显示,与CON组相比,A组和B组NDF表观消化率有所下降,DM、CP、ADF、EE、OM表观消化率均有所上升,且A组上升幅度最多,提示A组奶牛对营养物质的吸收较好。夏冬华等[37]利用奶牛瘤胃液进行体外发酵试验,向发酵罐中添加不同水平的丙酸杆菌,结果发现NDF消化率随着丙酸杆菌添加水平的提升而呈现下降趋势,这与本研究NDF表观消化率的结果一致。此外,夏冬华等[37]的研究结果还显示,CP消化率在丙酸杆菌添加水平达到3×10⁶时达最大值,与本研究的CP表观消化率上升趋势类似。夏冬华等[37]的研究结果还表明,随着丙酸杆菌添加水平的逐渐上升,ADF消化率呈现逐渐下降趋势,这与本试验ADF表观消化率结果不同,推测是由于酵母菌的影响。有研究表明,酵母菌培养物在瘤胃中能迅速增加瘤胃纤维分解菌的丰富度[38],从而提高对ADF的消化率,所以本试验ADF表观消化率呈现上升趋势可能是因为该原因。韩林[39]研究表明,向荷斯坦公牛饲粮中添加枯草芽孢杆菌能显著增加DM表观消化率,与本研究结果不同,推测是由于枯草芽孢杆菌有效含量以及采食量不同导致。Lehloenya等[9]向肉牛饲粮中添加一定水平的酵母菌培养物,结果发现酵母菌培养物能显著增加OM、EE等表观消化率,这与本试验结果略有不同,可能是由于丙酸根使瘤胃pH升高导致瘤胃环境发生变化引起酵母菌活性变化导致。

3.5 丙酸杆菌代谢产物制剂对奶牛瘤胃发酵参数的影响

瘤胃pH对维持瘤胃内环境稳态、维持瘤胃微生物的生长代谢发挥着重要作用[40]。本试验结果显示,饲粮中添加丙酸杆菌代谢产物制剂后,第56天瘤胃pH有上升趋势,这与夏冬华等[37]向体外发酵罐中添加丙酸杆菌导致pH逐渐下降的结果相反,推测是酵母菌的影响导致。有研究表明,适宜的酵母菌培养物添加水平能刺激埃氏巨球菌的生长,而埃氏巨球菌能快速消耗乳酸,从而导致瘤胃pH升高[41]。夏冬华等[37]的体外发酵试验还表明,随着丙酸杆菌添加水平的提升,瘤胃氨态氮含量呈现先上升后下降的趋势,与本试验瘤胃氨态氮含量变化结果一致。更低的乙丙比对于奶牛来说,意味着更好的瘤胃发酵模式,更高的能量利用效率。本试验结果表明,饲粮中添加丙酸杆菌代谢产物制剂显著降低了第28天和第56天瘤胃乙丙比,且A组最低,提示A组的瘤胃发酵模式最好。夏冬华等[37]研究发现,随着丙酸杆菌添加水平的提升,乙丙比也显著下降,与本试验结果一致。本试验结果还指出,饲粮中添加丙酸杆菌代谢产物制剂使得第28天和第56天瘤胃总挥发性脂肪酸含量略有上升,这能给奶牛提供更多的能量用于生产,与夏冬华等[37]、李月明等[42]、肖芬等[43]分别添加丙酸杆菌、枯草芽孢杆菌、酵母菌相关试验的使得总挥发性脂肪酸含量上升的结果一致。Raeth-Knight等[44]利用丙酸杆菌对奶牛进行研究,结果发现瘤胃异丁酸含量呈上升趋势,而丁酸呈下降趋势,与本试验部分研究结果一致。推测异丁酸含量结果不一致的原因可能是酵母菌和枯草芽孢杆菌联合影响的结果,有研究表明,酵母菌和枯草芽孢杆菌均会使瘤胃丁酸含量下降[32,44]。Reath-Knight等[44]研究还表明,异戊酸含量在丙酸杆菌作用下呈现先上升后下降的趋势,戊酸含量变化不显著,这与本试验结果一致。

3.6 丙酸杆菌代谢产物制剂对奶牛瘤胃菌群的影响

瘤胃微生物可以与非蛋白氮合成必需的氨基酸和维生素,并通过分解纤维素和淀粉产生挥发性脂肪酸,从而为宿主提供能量[45]。因此,当饲粮对瘤胃菌群造成影响后,进而会影响瘤胃微生物的多样性和代谢,最终改变宿主的生产性能与健康状况。本试验瘤胃细菌Alpha多样性结果显示,饲粮中添加丙酸杆菌代谢产物制剂不会引起奶牛瘤胃微生物丰富度的显著变化;Beta多样性结果显示,饲粮中添加丙酸杆菌代谢产物制剂可能会引起奶牛瘤胃微生物多样性的变化。这与泌乳早期奶牛饲粮中添加丙酸钙可显著提高瘤胃微生物Chao1指数和Observed species指数的结果相反[46]。Yao等[47]同样发现,肉牛饲喂丙酸钙对瘤胃微生物多样性无显著影响;且有报道表明饲粮成分与精料比例是影响瘤胃微生物种群结构的主要因素[48]。因此,可能是由于饲喂相同饲粮,致使本试验奶牛瘤胃菌群较为稳定。
本试验结果显示,在门水平上,各组奶牛瘤胃优势菌群以厚壁菌门和拟杆菌门为主,这与Jami等[49]研究结果一致。据报道,奶牛瘤胃菌群门水平上一般为变形菌门相对丰度较高[50],除拟杆菌门和厚壁菌门外,其他菌门相对丰度较低,较容易受到饮食和其他因素的影响。在属水平上,普雷沃氏菌属是瘤胃中相对丰度最高的优势菌属,且普雷沃氏菌属在瘤胃中较为稳定,不易受到试验因素的影响[51],这与本研究结果一致。Qi等[52]研究报道,普雷沃氏菌属有利于水解寡肽,其在瘤胃蛋白质的降解中起着重要作用。解琥珀酸菌属属于厚壁菌门,可以降解琥珀酸盐并生成丙酸[53],在本研究中,B组的瘤胃解琥珀酸菌属相对丰度较低,可能是受到瘤胃丙酸含量提升的影响,提示奶牛瘤胃微生物会随饲粮改变做出适应性变化。本试验结果显示,饲粮中添加丙酸杆菌代谢产物制剂对门、属水平上奶牛瘤胃优势菌群均无显著影响,目前尚不确定是否为丙酸杆菌代谢产物制剂浓度限值所致。本研究还发现,奶牛瘤胃鼠杆菌科相对丰度随饲粮中丙酸杆菌代谢产物制剂添加水平的提升呈降低趋势。有报道表明,鼠杆菌科可能与牛抗腹泻有关[54]。对于过度添加丙酸杆菌代谢产物制剂是否会引起奶牛腹泻这一问题,还待进一步研究。
瘤胃菌群是微生物共生联合体,其中微生物和宿主之间、微生物与微生物之间保持着相互依赖、相互制约的关系[55]。因此,了解瘤胃代谢与微生物相互之间的关系可以更进一步推测丙酸杆菌代谢产物制剂对奶牛瘤胃菌群的影响。本研究发现,在KEGG2水平上,3组瘤胃菌群均在碳水化合物代谢上富集,且随饲粮中丙酸杆菌代谢产物制剂添加水平的提升呈上升趋势,提示B组降解碳水化合物的能力可能更高,从而会产生更多的水解产物和丙酮酸[56]。此外,B组瘤胃菌群的其他氨基酸代谢相对丰度显著低于CON组和A组,这意味着该组奶牛瘤胃中合成微生物蛋白可能会有所降低,由于微生物蛋白作为乳腺中乳蛋白合成的原料[57],因此可能会对乳蛋白率造成一定影响。在KEGG3水平上,相对丰度>1%以上的仅有糖酵解/糖异生表现出显著差异,即B组糖酵解/糖异生相对丰度显著高于CON组和A组,意味着可以产生更多能量参与到三羧酸循环[58],从而为机体提供更多能量。

4 结论

基础饲粮中添加0.2%的丙酸杆菌代谢产物制剂可改善奶牛瘤胃发酵参数、乳品质和机体健康。
[1]
丁健, 胡艳, 邵丹. 抗生素类生长促进剂对畜禽肠道屏障功能的调节研究进展[J]. 中国畜牧杂志, 2019, 55(12):47-52.

DING J, HU Y, SHAO D. Advance in the regulation of antibiotic growth promoters on intestinal barrier function of livestock[J]. Chinese Journal of Animal Science, 2019, 55(12):47-52. (in Chinese)

[2]
刘宇, 王重庆, 梁静泊, 等. 抗生素替代物在畜禽生产中的应用及其作用机制研究进展[J]. 中国农学通报, 2024, 40(26):126-132.

DOI

LIU Y, WANG C Q, LIANG J B, et al. Research progress on application and mechanism of antibiotic substitutes in livestock and poultry production[J]. Chinese Agricultural Science Bulletin, 2024, 40(26):126-132. (in Chinese)

DOI

[3]
The economic costs of withdrawing antimicrobial growth promoters from the livestock sector[EB/OL].(2015-02-23)[2025-06-08]. https://www.oecd.org/en/publications/the-economic-costs-of-withdrawing-anti-microbial-use-in-the-livestock-sector_5js64kst5wvl-en.html.

[4]
中华人民共和国农业农村部. 中华人民共和国农村农业部公告第194号[EB/OL].[2025-09-15]. http://xmsyj.moa.gov.cn/zcjd/201907/t20190710_6320678.htm.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China. Announcement No.194 of the Ministry of Agriculture and Rural Affairs of the People’s Republic of China[EB/OL].[2025-09-15]. http://xmsyj.moa.gov.cn/zcjd/201907/t20190710_6320678.htm. (in Chinese)

[5]
WANG X H, ZHU M Y, LOOR J J, et al. Propionate alleviates fatty acid-induced mitochondrial dysfunction,oxidative stress,and apoptosis by upregulating PPARG coactivator 1 alpha in hepatocytes[J]. Journal of Dairy Science, 2022, 105(5):4581-4592.

DOI

[6]
ZHANG F, ZHAO Y G, WANG H, et al. Alterations in the milk metabolome of dairy cows supplemented with different levels of calcium propionate in early lactation[J]. Metabolites, 2022, 12(8):699.

DOI

[7]
DEFRAIN J M, HIPPEN A R, KALSCHEUR K F, et al. Effects of feeding propionate and calcium salts of long-chain fatty acids on transition dairy cow performance[J]. Journal of Dairy Science, 2005, 88(3):983-993.

PMID

[8]
FRANCISCO C C, CHAMBERLAIN C S, WALDNER D N, et al. Propionibacteria fed to dairy cows:effects on energy balance,plasma metabolites and hormones,and reproduction[J]. Journal of Dairy Science, 2002, 85(7):1738-1751.

DOI

[9]
LEHLOENYA K V, KREHBIEL C R, MERTZ K J, et al. Effects of propionibacteria and yeast culture fed to steers on nutrient intake and site and extent of digestion[J]. Journal of Dairy Science, 2008, 91(2):653-662.

DOI PMID

[10]
ZHANG F, ZHAO Y G, WANG Y, et al. Dietary supplementation with calcium propionate could beneficially alter rectal microbial composition of early lactation dairy cows[J]. Frontiers in Veterinary Science, 2022,9:940216.

[11]
YE Z, XU Y J, LIU Y F. Influences of dietary oils and fats,and the accompanied minor content of components on the gut microbiota and gut inflammation:a review[J]. Trends in Food Science & Technology, 2021,113:255-276.

[12]
ZHAO X H, CHEN Z D, ZHOU S, et al. Effects of daidzein on performance,serum metabolites,nutrient digestibility,and fecal bacterial community in bull calves[J]. Animal Feed Science and Technology, 2017,225:87-96.

[13]
KONG F L, WANG S, ZHANG Y J, et al. Rumen microbiome associates with postpartum ketosis development in dairy cows:a prospective nested case-control study[J]. Microbiome, 2025, 13(1):69.

DOI

[14]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. An improved method for colorimetric determination of ammonia nitrogen in rumen fluid[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[15]
郭盼盼, 严昌国, 高青山, 等. 日粮精粗比对延边黄牛瘤胃发酵特性及微生物区系的影响[J]. 饲料研究, 2015(21):36-41.

GUO P P, YAN C G, GAO Q S, et al. Effects of dietary concentrate-to-forage ratio on rumen fermentation attributes and microbial community in Yanbian yellow cattle[J]. Feed Research, 2015(21):36-41. (in Chinese)

[16]
李红玉, 刘强, 王聪, 等. 丙酸镁对泌乳早期奶牛体况、泌乳性能和代谢参数的影响[J]. 草业学报, 2009, 18(4):187-194.

LI H Y, LIU Q, WANG C, et al. Effects of magnesium propionate supplementation on body condition, lactation performance and metabolic parameters in early lactation Holstein dairy cows[J]. Acta Prataculturae Sinica, 2009, 18(4):187-194. (in Chinese)

[17]
张心壮, 鲁琳, 孟庆翔, 等. 丙酸钙对高精料底物瘤胃体外发酵产气量、发酵参数和干物质降解率的影响[J]. 动物营养学报, 2013, 25(12):2906-2912.

DOI

ZHANG X Z, LU L, MENG Q X, et al. Effects of calcium propionate on in vitro ruminal gas production,fermentation parameters and dry matter degradation rate of substrate with high concentrate[J]. Chinese Journal of Animal Nutrition, 2013, 25(12):2906-2912. (in Chinese)

[18]
LAWRENCE M, POLUKIS S, BARNARD A M, et al. Evaluating the effects of Lactobacillus animalis and Propionibacterium freudenreichii on performance and rumen and fecal measures in lactating dairy cows[J]. Journal of Dairy Science, 2021, 104(4):4119-4133.

DOI

[19]
李传凤, 曾思凡. 酵母菌培养物对夏季高温环境奶牛生产性能和血液生化指标的影响[J]. 中国饲料, 2024(16):41-44.

LI C F, ZENG S F. Effects of yeast culture on production performance and blood biochemical indicators of dairy cows in high temperature environment in summer[J]. China Feed, 2024(16):41-44. (in Chinese)

[20]
ZHANG Q, MA L F, ZHANG X Q, et al. Feeding live yeast (Saccharomyces cerevisiae) improved performance of mid-lactation dairy cows by altering ruminal bacterial communities and functions of serum antioxidation and immune responses[J]. BMC Veterinary Research, 2024, 20(1):245.

DOI PMID

[21]
LAMONTAGNE J, RICO D E, PERDOMO C M, et al. Effects of direct-fed Bacillus subtilis and Bacillus licheniformis on production performance and milk fatty acid profile in dairy cows[J]. Journal of Dairy Science, 2023, 106(3):1815-1825.

DOI

[22]
JIA P, TU Y, LIU Z H, et al. Diets supplementation with Bacillus subtilis and Macleaya cordata extract improve production performance and the metabolism of energy and nitrogen,while reduce enteric methane emissions in dairy cows[J]. Animal Feed Science and Technology, 2022,294:115481.

[23]
陈伟松, 王冬群. 不同水平的活性干酵母对犊牛生长性能、免疫力及抗氧化功能的影响[J]. 饲料研究, 2022, 45(23):23-26.

CHEN W S, WANG D Q. Effect of different levels of active dry yeast on growth performance,immunity and antioxidant function of calves[J]. Feed Research, 2022, 45(23):23-26. (in Chinese)

[24]
王亮亮, 杨日亮, 丁洪涛. 丙酸菌对奶牛产奶量与乳脂率的影响[J]. 饲料研究, 2015(11):31-33.

WANG L L, YANG R L, DING H T. Impact of propionate-producing bacteria on milk yield and milk fat percentage in dairy cows[J]. Feed Research, 2015(11):31-33. (in Chinese)

[25]
朱晋佳, 龚龑, 彭锦芬, 等. 添加酵母菌对奶牛血液生化、免疫力及生产性能的影响[J]. 激光生物学报, 2020, 29(5):424-432.

ZHU J J, GONG Y, PENG J F, et al. Effects of yeast addition on blood biochemistry immunity and production performance of dairy cows[J]. Acta Laser Biology Sinica, 2020, 29(5):424-432. (in Chinese)

[26]
张秉胜, 李锦, 张永立. 饲料添加剂枯草芽孢杆菌在泌乳奶牛上的应用研究[J]. 北方牧业, 2022(6):24-25.

ZHANG B S, LI J, ZHANG Y L. Efficacy of Bacillus subtilis dietary supplementation on lactation performance in dairy cows[J]. Northern Animal Industry, 2022(6):24-25. (in Chinese)

[27]
赵珺. 枯草芽孢杆菌与酵母培养物对奶牛采食量和泌乳量的影响[J]. 河南农业科学, 2006(11):110-112.

DOI

ZHAO J. Effects of the culture both Bacillus subtilis and yeast on intake and milk yield of dairy cattle[J]. Journal of Henan Agricultural Sciences, 2006(11):110-112. (in Chinese)

[28]
张振环, 李思源. 日粮中DDGS替代玉米对犏雌牛产奶量、乳品质及瘤胃发酵的影响[J]. 中国饲料, 2024(4):121-124.

ZHANG Z H, LI S Y. The effect of replacing corn with DDGS in the diet on milk production,milk quality,and rumen fermentation of female cattle[J]. China Feed, 2024(4):121-124. (in Chinese)

[29]
LIU Q, WANG C, YANG W Z, et al. Effects of calcium propionate supplementation on lactation performance,energy balance and blood metabolites in early lactation dairy cows[J]. Journal of Animal Physiology and Animal Nutrition, 2010, 94(5):605-614.

DOI

[30]
郭园. 饲喂复合酵母培养物对奶牛产奶量及乳成分的影响[J]. 科技创新与应用, 2016(30):54-54,55.

GUO Y. Effects of dietary complex yeast culture supplementation on milk yield and composition in lactating dairy cows[J]. Technology Innovation and Application, 2016(30):54-54,55. (in Chinese)

[31]
SUN P, WANG J Q, DENG L F. Effects of Bacillus subtilis natto on milk production,rumen fermentation and ruminal microbiome of dairy cows[J]. Animal, 2013, 7(2):216-222.

DOI

[32]
仲伟光, 祁宏伟, 赵玉民. 酵母菌制剂在调控反刍动物生产性能和瘤胃生态中的应用[J]. 中国畜牧杂志, 2018, 54(8):26-30.

ZHONG W G, QI H W, ZHAO Y M. Application of yeast preparation to regulate ruminant production and rumen ecology[J]. Chinese Journal of Animal Science, 2018, 54(8):26-30. (in Chinese)

[33]
李春艳, 秦保亮. 奶牛隐性乳房炎对牛奶品质的影响[J]. 畜牧兽医科学(电子版), 2019(3):16-17.

LI C Y, QIN B L. Impact of subclinical mastitis in dairy cattle on milk composition and hygienic quality[J]. Graziery Veterinary Sciences (Electronic Version), 2019(3):16-17. (in Chinese)

[34]
恩和道力格尔. 饲喂酵母和枯草芽孢杆菌对奶牛产奶性能、免疫和抗氧化能力及氮排放的影响[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2017.

ENKHDOLGOR. Effects of feeding yeast and bacillus subtilis on milk performance,immune and antioxidant capacity,and nitrogen emission in dairy cows[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2017. (in Chinese)

[35]
OYEBADE A O, LEE S, SULTANA H, et al. Effects of direct-fed microbial supplementation on performance and immune parameters of lactating dairy cows[J]. Journal of Dairy Science, 2023, 106(12):8611-8626.

DOI

[36]
CHEN J K, HARSTAD O M, MCALLISTER T, et al. Propionic acid bacteria enhance ruminal feed degradation and reduce methane production in vitro[J]. Acta Agriculturae Scandinavica Section A:Animal Science, 2020, 69(3):169-175.

[37]
夏冬华, 丁洪涛, 杨新艳, 等. 丙酸杆菌对奶牛体外瘤胃发酵及日粮营养物质消化率的影响[J]. 畜牧与兽医, 2012, 44(11):45-48.

XIA D H, DING H T, YANG X Y, et al. Effects of propionibacterium on in vitro rumen fermentation and nutrient digestibility of dairy cattle diets[J]. Animal Husbandry & Veterinary Medicine, 2012, 44(11):45-48. (in Chinese)

[38]
SOUSA D O, OLIVEIRA C A, VELASQUEZ A V, et al. Live yeast supplementation improves rumen fibre degradation in cattle grazing tropical pastures throughout the year[J]. Animal Feed Science and Technology, 2018,236:149-158.

[39]
韩林. 木聚糖酶和枯草芽孢杆菌对牛生长性能和瘤胃发酵的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2021.

HAN L. Effects of xylanase and Bacillus subtilis on growth performance and rumen fermentation in Holstein dairy bulls[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2021. (in Chinese)

[40]
何姗姗, 吴力健, 裴世腾, 等. 反刍动物乳酸利用菌的代谢、分解模式及其在瘤胃酸中毒中的应用[J]. 中国畜牧杂志, 2025, 61(2):20-25.

HE S S, WU L J, PEI S T, et al. The metabolism and degradation patterns of lactate-utilizing bacteria in ruminants and their application in rumen acidosis[J]. Chinese Journal of Animal Science, 2025, 61(2):20-25. (in Chinese)

[41]
CALLAWAY E S, MARTIN S A. Effects of a Saccharomyces cerevisiae culture on ruminal bacteria that utilize lactate and digest cellulose[J]. Journal of Dairy Science, 1997, 80(9):2035-2044.

DOI

[42]
李月明, 栾嘉明, 张敏, 等. 不同浓度枯草芽孢杆菌对体外瘤胃发酵特性的影响[J]. 中国畜牧兽医, 2019, 46(4):1031-1037.

DOI

LI Y M, LUAN J M, ZHANG M, et al. Effects of Bacillus subtilis on in vitro rumen fermentation characteristics[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(4):1031-1037. (in Chinese)

[43]
肖芬, 毛家真, 向小娥, 等. 补饲瘤胃源活毕赤酵母菌液对奶水牛瘤胃发酵和营养物质降解率的影响[J]. 畜牧与兽医, 2025, 57(8):22-27.

XIAO F, MAO J Z, XIANG X E, et al. Effects of rumen derived live Pichia kudriavzevii culture on rumen fermentation and degradation rate of feed nutrients in dairy buffaloes[J]. Animal Husbandry & Veterinary Medicine, 2025, 57(8):22-27. (in Chinese)

[44]
RAETH-KNIGHT M L, LINN J G, JUNG H G. Effect of direct-fed microbials on performance,diet digestibility,and rumen characteristics of Holstein dairy cows[J]. Journal of Dairy Science, 2007, 90(4):1802-1809.

DOI

[45]
HE Y, NIU W J, QIU Q H, et al. Effect of calcium salt of long-chain fatty acids and alfalfa supplementation on performance of Holstein bulls[J]. Oncotarget, 2018, 9(3):3029-3042.

DOI PMID

[46]
ZHANG X Z, CHEN W B, WU X, et al. Calcium propionate supplementation improves development of rumen epithelium in calves via stimulating G protein-coupled receptors[J]. Animal, 2018, 12(11):2284-2291.

DOI PMID

[47]
YAO Q Q, LI Y, MENG Q X, et al. The effect of calcium propionate on the ruminal bacterial community composition in finishing bulls[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(4):495-504.

DOI PMID

[48]
BI Y L, ZENG S Q, ZHANG R, et al. Effects of dietary energy levels on rumen bacterial community composition in Holstein heifers under the same forage to concentrate ratio condition[J]. BMC Microbiology, 2018, 18(1):69.

DOI PMID

[49]
JAMI E, MIZRAHI I. Composition and similarity of bovine rumen microbiota across individual animals[J]. PLoS One, 2012, 7(3):e33306.

DOI

[50]
PAZ H A, ANDERSON C L, MULLER M J, et al. Rumen bacterial community composition in Holstein and Jersey cows is different under same dietary condition and is not affected by sampling method[J]. Frontiers in Microbiology, 2016,7:1206.

[51]
KONG Y H, TEATHER R, FORSTER R. Composition,spatial distribution,and diversity of the bacterial communities in the rumen of cows fed different forages[J]. FEMS Microbiology Ecology, 2010, 74(3):612-622.

DOI

[52]
QI W L, XUE M Y, JIA M H, et al. Understanding the functionality of the rumen microbiota:searching for better opportunities for rumen microbial manipulation[J]. Animal Bioscience, 2024, 37(2):370-384.

DOI

[53]
MYER P R, SMITH T P L, WELLS J E, et al. Rumen microbiome from steers differing in feed efficiency[J]. PLoS One, 2015, 10(6):e0129174.

DOI

[54]
CHEN H W, LIU Y L, HUANG K L, et al. Fecal microbiota dynamics and its relationship to diarrhea and health in dairy calves[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):132.

DOI PMID

[55]
李蒋伟, 王志有, 侯生珍, 等. 日粮精粗比对育肥藏羊瘤胃组织形态及微生物菌群的影响[J]. 草业学报, 2021, 30(3):100-109.

DOI

LI J W, WANG Z Y, HOU S Z, et al. Effects of dietary concentrate:roughage ratio on rumen morphology and microbial flora in fattening Tibetan sheep[J]. Acta Prataculturae Sinica, 2021, 30(3):100-109. (in Chinese)

[56]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

DOI

[57]
仝钰洁, 魏勇, 马晓姣, 等. 影响奶牛乳蛋白合成的主要营养因素分析[J]. 饲料工业, 2023, 44(5):84-88.

TONG Y J, WEI Y, MA X J, et al. Analysis of the main nutritional factors affecting milk protein synthesis in dairy cattle[J]. Feed Industry, 2023, 44(5):84-88. (in Chinese)

[58]
ALLEN M S, PIANTONI P. Carbohydrate nutrition:managing energy intake and partitioning through lactation[J]. The Veterinary Clinics of North America:Food Animal Practice, 2014, 30(3):577-597.

DOI

Outlines

/