RESEARCH PAPER

Effects of Tribulus terrestris By-Products on Rumen Fermentation Parameters and Rumen Microflora Structure of Tan Sheep

  • LI Ruizhen , 1 ,
  • WANG Tailu 1 ,
  • YANG Yuwei 2 ,
  • MA Qing 2 ,
  • XU Rui 3 ,
  • ZHOU Yuxiang , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Institute of Animal Research, Ningxia Academy of Agriculture and Forestry, Yinchuan 750002, China
  • 3 Chengguan Animal Husbandry and Veterinary Workstation, Pingluo 753400, China
* professor, E-mail:

Received date: 2025-04-20

  Online published: 2026-02-12

Abstract

This experiment was conducted to investigate the effects of Tribulus terrestris by-products (TTB) on rumen fermentation parameters and rumen microflora structure of Tan sheep. Sixty-eight healthy 3-month-old male Tan sheep lambs with an average body weight of (24.68±0.90) kg were selected, numbered, and randomly divided into four groups (17 lambs per group), with individual pen feeding. The four groups were fed experimental diets supplemented with 0 (control group), 5% (trial group Ⅰ), 10% trial group Ⅱ), and 15% (trial group Ⅲ) TTB, respectively. The pre-trial period lasted for 10 days, followed by a 60-day formal trial period. The results showed that: 1) compared with the control group, the molar ratio of propionate in trial group Ⅰ was extremely significantly increased (P<0.01), the molar ratios of isobutyrate and isovalerate in trial groups Ⅰ and Ⅱ were extremely significantly (P<0.01) and significantly decreased (P<0.05), respectively), the molar ratio of valerate in experimental groups Ⅰ and Ⅲ was extremely significantly decreased (P<0.01), and the molar ratio of butyrate in all trial groups was extremely significantly decreased (P<0.01). 2) No significant differences were observed in the Alpha diversity indexes of the rumen microflora among the groups (P>0.05). Principal coordinate analysis (PCoA) and non-metric multidimensional scaling analysis (NMDS) indicated that the rumen microflora structure of trial group Ⅰ was similar to that of the control group. 3) Compared with the control group, the relative abundance of Saccharofermentans in trial group Ⅰ was extremely significantly increased (P<0.01), and the relative abundance of Ruminococcus in three trial groups was extremely significantly decreased (P<0.01). 4) KEGG pathway enrichment analysis revealed that, compared with the control group, trial group Ⅰ exhibited significantly elevated relative abundances in pathways related to glycan biosynthesis and metabolism, endocrine systems, metabolism of terpenoids and polyketides, and energy metabolism (P<0.05). In conclusion, dietary supplementation with 5% TTB has a positive effect on rumen fermentation of Tan sheep, shifting the rumen fermentation pattern toward propionate production without negatively affecting the rumen microflora structure and diversity.

Cite this article

LI Ruizhen , WANG Tailu , YANG Yuwei , MA Qing , XU Rui , ZHOU Yuxiang . Effects of Tribulus terrestris By-Products on Rumen Fermentation Parameters and Rumen Microflora Structure of Tan Sheep[J]. Chinese Journal of Animal Nutrition, 2026 , 38(2) : 1247 -1264 . DOI: 10.12418/CJAN2026.100

近年来,随着生活水平的提高,人们对肉、蛋、奶等畜产品的需求持续增长,推动我国畜禽养殖规模不断扩大,饲料需求量也随之急剧增加。目前,饲料资源短缺问题日益凸显。在此背景下,提高现有饲料资源的利用效率、加快开发新型替代资源显得尤为重要。除了进一步提升常规饲料的利用率,还应积极推进秸秆、农作物加工副产物以及其他非常规饲料资源的开发利用,以促进饲料工业的可持续健康发展。其中,中草药因具有促进动物消化代谢、改善瘤胃菌群结构、提高胃肠道微生物多样性等功能,近年来受到广泛关注[1]
白蒺藜(Tribulus terrestris L.)是一种兼具药用价值与营养价值的草本植物,其果实、花、茎、叶和根均可入药,素有“草中名药”之誉[2]。在我国,白蒺藜分布广泛,在宁夏贺兰山、灵武、同心等地均有发现。研究表明,白蒺藜具有抗氧化、抗衰老、抗肿瘤及抗炎等多种药理活性[3]。此外,白蒺藜还富含蛋白质,含量可达21.33%,是优质的饲粮蛋白质来源,其粗脂肪、粗纤维与粗灰分含量则分别为1.1%、0.5%与5.3%[3-5]。若以干重计,白蒺藜鲜叶中粗蛋白质、碳水化合物和粗脂肪含量分别为13.21%、46.79%和1.00%[3,6]。白蒺藜中含有18种氨基酸,包括8种人体必需氨基酸,尤以谷氨酸和天冬氨酸含量较高[7-8]。目前,白蒺藜的果实和根部已用作饲料添加剂,但其枝、茎、叶等副产物尚未实现有效的饲料化利用,这不仅导致资源浪费,还可能带来环境污染问题。因此,深入研究如何将白蒺藜副产物转化为高效的饲料资源,推动其在饲料产业中的规模化应用,具有重要的研究价值与现实意义。
瘤胃中的微生物群落始终处于一个相对稳定但又持续变化的状态,确保瘤胃菌群结构稳定是反刍动物消化系统的核心任务。饲粮组成和营养水平是影响瘤胃菌群结构和功能的关键因素。冯志华[9]研究发现,蒺藜皂苷可显著抑制奶牛甲烷排放,并改变瘤胃发酵模式,降低瘤胃液氨态氮(NH3-N)和乙酸浓度,同时提高丙酸浓度,有助于提高奶牛对饲粮中能量和蛋白质的利用效率。尽管已有研究提供了白蒺藜作为饲料原料的初步见解,但白蒺藜作为粗饲料资源在反刍动物生产中的应用尚未得到充分挖掘。迄今,宁夏地区对于滩羊瘤胃菌群的研究多集中于枸杞、黄芪、苦豆子等天然药物活性植物,而对白蒺藜的应用多集中在提取物的临床研究。在前期开发非常规饲料资源的研究中,本团队已将蒺藜副产物添加至滩羊饲粮,并初步证实其能够提高滩羊的可消化氮、沉积氮及宰前活重,且对生长性能与肉品质无不良影响[10]。基于上述结果,本试验将进一步探究蒺藜副产物对滩羊瘤胃发酵参数与菌群结构的影响,以期为提升滩羊饲料资源利用效率、拓展非常规饲料来源提供科学依据。

1 材料与方法

1.1 伦理声明

本试验程序获得了宁夏大学科技伦理委员会的批准,批准编号为NXU-2023-093。

1.2 试验设计

饲养试验采用单因素完全随机设计,选择68只体重相近[(24.68±0.90) kg]且体况健康的3月龄滩羊公羔,编号后随机分为4组,每组17只。4组羔羊分别饲喂添加0(对照组)、5%(试验Ⅰ组)、10%(试验Ⅱ组)和15%(试验Ⅲ组)白蒺藜副产物的试验饲粮。试验期共70 d,其中预试期10 d,正试期60 d。试验所用白蒺藜副产物的制备方法及其主要活性成分、常规营养成分含量以及试验饲粮组成及营养水平参见本团队前期发表文章[10]

1.3 饲养管理

试验期间,各组试验羊均采用单栏饲养方式,于每天08:00与17:00各饲喂1次全混合日粮,自由采食和饮水;试验羊严格按照标准化养殖场的饲养管理措施进行免疫、消毒、驱虫和防疫,保持圈舍清洁卫生,圈舍自然通风。

1.4 样品采集与指标测定

1.4.1 瘤胃液的采集与前处理

于正试期第60天,每组选择6只与该组羊只平均体重相近的滩羊,使用羊口腔瘤胃液采集器,于晨饲前采集瘤胃液50 mL,立即用便携式pH计(PHSJ-3F,雷磁)测定pH。采集的瘤胃液用4层纱布过滤,过滤好的瘤胃液分为3份:2份用标记好的10 mL离心管分装,加入0.01 mol/L的硫酸与0.25 g/mL的偏磷酸,处理好的样品放置于-20 ℃的冰箱中保存,用于NH3-N和挥发性脂肪酸(VFA)浓度的测定;1份用标记好的5 mL冻存管分装,置于液氮中,用于瘤胃菌群结构的测定。

1.4.2 瘤胃发酵参数测定

参照许丽卫等[11]方法,使用气相色谱仪测定瘤胃液中各VFA浓度,并计算总挥发性脂肪酸(TVFA)以及各VFA的摩尔比例;瘤胃液中NH3-N浓度采用比色法利用分光光度计测定,具体方法参照冯宗慈等[12]

1.4.3 瘤胃菌群结构测定

将采集的瘤胃液样本送至北京奥维森基因科技有限公司进行高通量测序。从瘤胃液样品中提取DNA,利用1%琼脂糖凝胶电泳检测抽提的基因组DNA。以稀释后的基因组DNA为模板,选择16S rDNA的V3~V4区作为测序区域。所有样本的扩增子文库均在Illumina MiSeq平台进行处理,相似度≥97%的序列被分配到相同的操作分类单元(OTUs);在进行去引物、质控、去噪、拼接和去嵌合体后,对得到的有效数据进行物种注释以及丰度分析。采用Pearson相关性分析,探究瘤胃发酵参数与瘤胃菌门与菌属之间的相关性。基于PICRUSt 2软件,对瘤胃菌群的功能进行预测。

1.5 数据统计与分析

试验数据使用Excel 2021软件记录和简单处理,利用SAS 8.2软件中的ANOVA过程进行单因素方差分析,并采用LSD法进行组间多重比较,以P<0.05为差异显著标准,P<0.01为差异极显著标准。结果用平均值±标准差来表示。

2 结果与分析

2.1 白蒺藜副产物对滩羊瘤胃发酵参数的影响

表1可知,与对照组和试验Ⅰ组相比,试验Ⅱ组和试验Ⅲ组NH3-N浓度、乙酸摩尔比例和乙酸/丙酸比值极显著增加(P<0.01),TVFA浓度和丙酸摩尔比例极显著降低(P<0.01);同时,与对照组相比,试验Ⅰ组的丙酸摩尔比例极显著提高(P<0.01),试验Ⅰ组和试验Ⅱ组异丁酸与异戊酸摩尔比例分别极显著(P<0.01)和显著降低(P<0.05),试验Ⅰ组和试验Ⅲ组戊酸摩尔比例极显著降低(P<0.01),各试验组丁酸摩尔比例均极显著降低(P<0.01)。
表1 白蒺藜副产物对滩羊瘤胃发酵参数的影响

Table 1 Effects of Tribulus terrestris by-products on rumen fermentation parameters of Tan sheep (n=6)

项目
Items
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value
pH 6.31±0.18 6.57±0.13 6.74±0.25 6.53±0.47 0.121
氨态氮NH3-N/(mg/dL) 8.70±0.59Cc 10.96±2.08Cc 13.91±2.65Bb 17.56±1.90Aa <0.001
总挥发性脂肪酸TVFA/(mmol/L) 68.04±4.22Aa 65.38±1.70Aa 37.29±0.74Cc 54.47±1.72Bb <0.001
各挥发性脂肪酸的摩尔比例Molar ratio of each VFA/%
乙酸Acetate 64.24±2.10Bb 65.42±1.72Bb 74.06±0.74Aa 72.45±1.93Aa <0.001
丙酸Propionate 25.26±1.54Bb 27.64±1.58Aa 17.31±0.83Cc 18.35±1.65Cc <0.001
丁酸Butyrate 8.64±0.85Aa 5.83±0.52Cc 7.13±0.21Bb 7.65±0.41Bb <0.001
异丁酸Isobutyrate 0.54±0.10Aa 0.36±0.05Bb 0.35±0.01Bb 0.50±0.06Aa <0.001
戊酸Valerate 0.72±0.06Bb 0.48±0.02Dd 0.82±0.03Aa 0.54±0.02Cc <0.001
异戊酸Isovalerate 0.61±0.33a 0.27±0.04c 0.33±0.01bc 0.51±0.19ab 0.020
乙酸/丙酸Acetate/propionate 2.56±0.23Bb 2.38±0.20Bb 4.29±0.25Aa 3.98±0.47Aa <0.001

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 白蒺藜副产物对滩羊瘤胃菌群结构的影响

2.2.1 瘤胃液样本测序数据
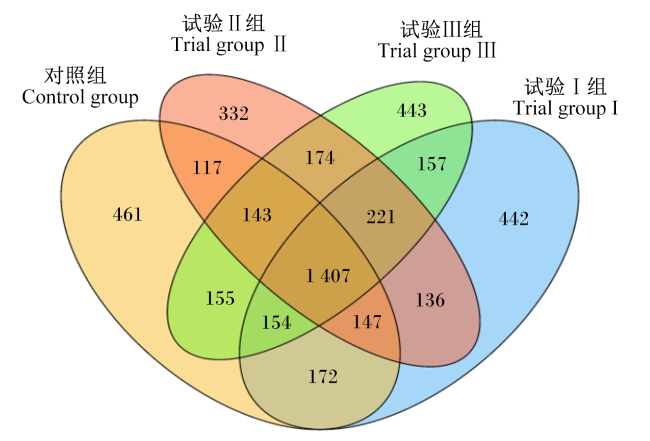
24份滩羊瘤胃液样本经16S rDNA高通量测序,共获得1 324 632条有效reads,平均每个样本的有效reads为55 193条。对一致性为97%以上的有效数据进行OTUs聚类分析,共得到4 661个OTUs,其中对照组发现2 756个OTUs,试验I组发现2 836个OTUs,试验II组发现2 677个OTUs,试验III组发现2 854个OTUs,4组共享了1 407个OTUs(图1),表明饲粮中添加5%和15%白蒺藜副产物会增加滩羊瘤胃液中OTUs数目,即增加了细菌菌群的种类。
图1 瘤胃菌群韦恩图

Fig.1 Venn diagram of microflora in rumen

2.2.2 瘤胃菌群多样性分析

2.2.2.1 Alpha多样性

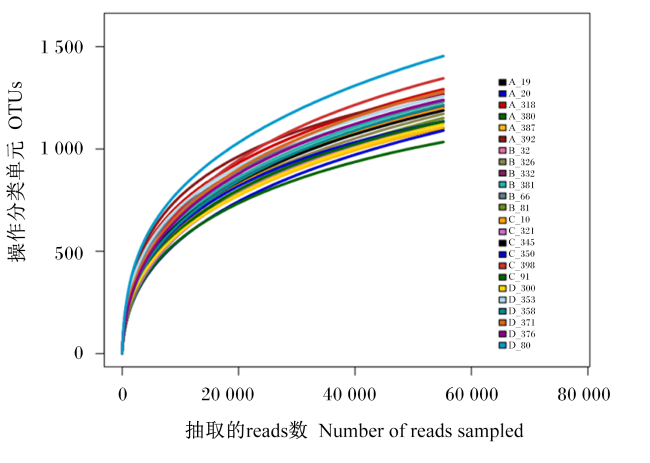
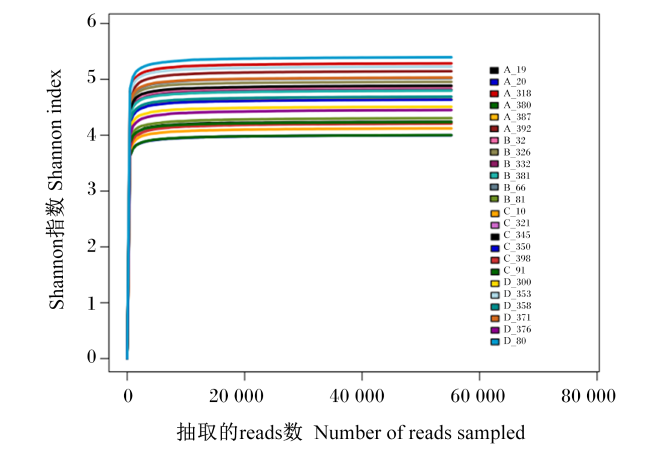
图2可知,所有样本的稀释曲线均为先陡然升高后趋于平缓,表明测序数据量已趋合理,更深入的测序对滩羊瘤胃液中检测出新的OTUs的贡献很小。由图3可知,各样本的Shannon指数稀释曲线均为先直线上升后骤然到达平台期,表明测序趋向饱和,即测序深度已覆盖样本中绝大多数微生物种类,能够进行菌群多样性分析。
图2 稀释曲线

A:对照组;B:试验Ⅰ组;C:试验Ⅱ组;D:试验Ⅲ组。字母后的数字为样本编号。下图同。

Fig.2 Rarefaction curves

A: control group; B: trial groupⅠ; C: trial groupⅡ; D: trial group Ⅲ. The numbers following the letters are the sample IDs. The same as below.

图3 Shannon指数曲线

Fig.3 Shannon index curves

2.2.2.2 Beta多样性

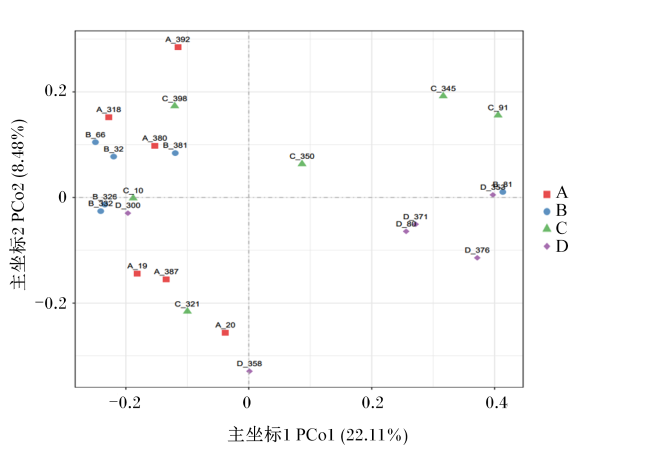
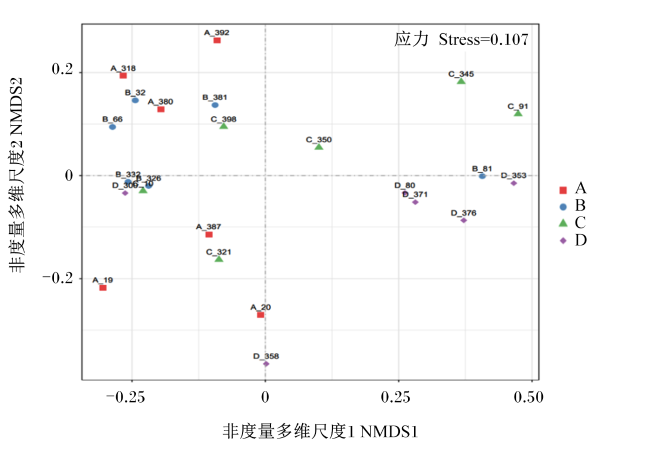
在OTUs水平上基于Bray-Curtis距离矩阵进行主坐标分析(PCoA),结果显示,主坐标1(PCo1)和主坐标2(PCo2)对于样本之间菌群组成差异的贡献度分别为22.11%和8.48%(图4),可以充分反映样本间的差异。基于Bray-Curtis距离矩阵进行非度量多维尺度分析(NMDS),结果显示,应力(stress)值(0.107)小于0.2(图5),能够说明菌群多样性检测数据具有准确性。在2种方法下,对照组和试验Ⅰ组距离较近,试验Ⅱ组和试验Ⅲ组较为独立,试验Ⅱ组主要分布在PCo1/NMDS1的正值区域,试验Ⅲ组主要分布在PCo2/NMDS2的负值区域,表明对照组与试验Ⅰ组的瘤胃菌群结构类似,而对照组和试验Ⅰ组与试验Ⅱ组和试验Ⅲ组的瘤胃菌群结构存在明显差异,说明添加不同水平白蒺藜副产物可改变滩羊瘤胃菌群结构。
图4 主坐标分析图

Fig.4 Diagram of PCoA

图5 非度量多维尺度分析图

Fig.5 Diagram of NMDS

表2可知,各组覆盖度均在0.98之上,说明采集的样本足以反映滩羊瘤胃菌群情况;各组间各Alpha多样性指数均没有显著差异(P>0.05),表明饲粮中添加5%、10%和15%的白蒺藜副产物均未对滩羊瘤胃菌群丰富度和多样性产生显著影响。
表2 白蒺藜副产物对滩羊瘤胃菌群Alpha多样性指数的影响

Table 2 Effects of Tribulus terrestris by-products on rumen microflora Alpha diversity indexes of Tan sheep

项目
Items
对照组
Control group
试验Ⅰ组
Trial group I
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value
Observed_species指数
Observed_species index
1 148.48±105.33 1 211.63±46.24 1 188.15±82.37 1 261.43±109.63 0.206
Chao1指数Chao1 index 1 491.38±153.70 1 581.22±46.71 1 534.12±92.69 1 642.59±176.73 0.235
Shannon指数Shannon index 6.57±0.82 6.92±0.37 6.33±0.44 7.04±0.57 0.154
Simpson指数Simpson index 0.96±0.03 0.98±0.01 0.96±0.02 0.98±0.01 0.099
PD_whole_tree指数
PD_whole_tree index
109.57±10.52 117.66±8.31 110.11±9.37 114.93±5.90 0.333
覆盖度Coverage 0.99±0.00 0.99±0.00 0.99±0.00 0.99±0.00 0.990

2.2.3 瘤胃菌群物种组成分析

2.2.3.1 门水平菌群物种组成

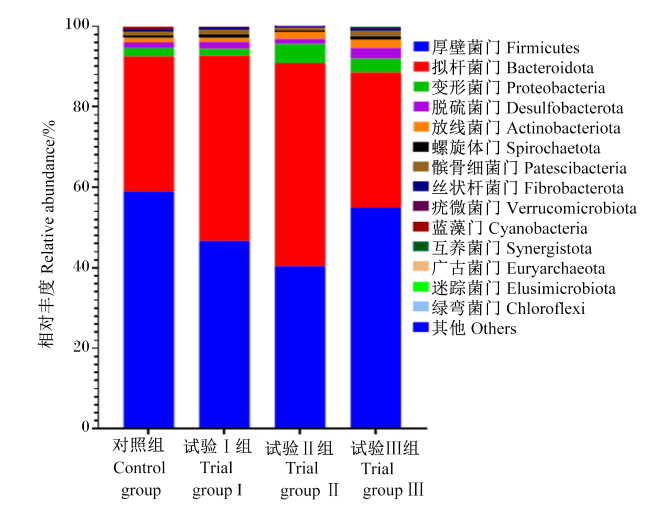
根据物种注释结果,滩羊瘤胃菌群在门水平上的组成见图6,各菌门的相对丰度见表3。在滩羊瘤胃菌群中共检测到20个菌门,其中6个菌门相对丰度高于1%,相对丰度排名前3的菌门分别为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)和变形菌门(Proteobacteria),三者之和占总相对丰度的91.96%以上。与对照组相比,试验Ⅱ组Bacteroidota和Proteobacteria的相对丰度显著升高(P<0.05),而Firmicutes的相对丰度显著降低(P<0.05)。
图6 滩羊瘤胃菌群门水平组成柱形图

Fig.6 Histogram of composition of rumen microflora at phylum level of Tan sheep

表3 白蒺藜副产物对滩羊瘤胃菌群门水平相对丰度的影响

Table 3 Effects of Tribulus terrestris by-products on relative abundance of rumen microflora at phylum level of Tan sheep %

项目
Items
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value
厚壁菌门Firmicutes 59.03±12.47a 46.68±4.78ab 40.40±9.94b 54.92±14.18a 0.035
拟杆菌门Bacteroidota 33.47±12.12b 46.05±4.72ab 50.46±9.71a 33.63±13.21b 0.020
变形菌门Proteobacteria 2.09±1.19b 1.68±0.55b 4.76±2.15a 3.41±2.46ab 0.027
脱硫菌门Desulfobacterota 1.38±0.90 1.73±0.67 1.23±0.78 2.61±1.27 0.078
放线菌门Actinobacteriota 1.14±1.14 0.98±0.75 1.77±1.73 2.15±1.84 0.470
髌骨细菌门Patescibacteria 1.07±0.58 1.24±0.98 0.57±0.40 1.57±1.04 0.211
螺旋体门Spirochaetota 0.59±0.22 0.83±0.68 0.38±0.34 0.61±0.29 0.364
丝状杆菌门Fibrobacterota 0.30±0.21 0.35±0.32 0.20±0.19 0.42±0.30 0.517
疣微菌门Verrucomicrobiota 0.38±0.26 0.24±0.23 0.06±0.04 0.28±0.19 0.077
蓝藻门Cyanobacteria 0.32±0.32 0.05±0.05 0.05±0.05 0.14±0.13 0.052
互养菌门Synergistota 0.08±0.04 0.12±0.08 0.10±0.06 0.19±0.08 0.062
广古菌门Euryarchaeota 0.12±0.11 0.05±0.04 0.05±0.04 0.04±0.02 0.101
迷踪菌门Elusimicrobiota 0.01±0.01 0.00±0.00 0.02±0.02 0.02±0.01 0.094
绿弯菌门Chloroflexi 0.01±0.01 0.01±0.00 0.01±0.01 0.00±0.00 0.576
其他Others 0.01±0.01 0.01±0.00 0.01±0.01 0.00±0.00 0.482

2.2.3.2 属水平菌群物种组成

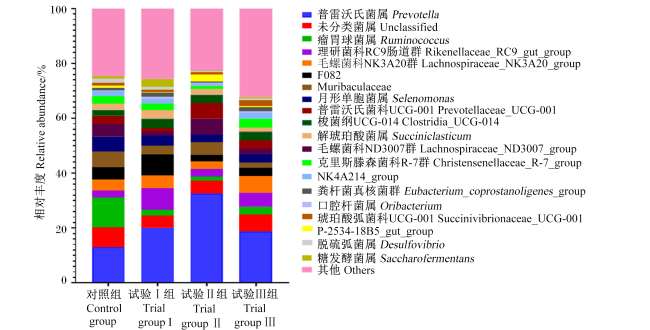
根据物种注释结果,滩羊瘤胃菌群在属水平上的组成见图7,各菌属的相对丰度见表4。有368个菌属在滩羊瘤胃菌群中被检测到,其中20个菌属的相对丰度高于1%,其中普雷沃氏菌属(Prevotella)、瘤胃球菌属(Ruminococcus)和未分类菌属(Unclassified)为优势菌属,三者之和占总相对丰度的26.69%以上。与对照组相比,试验Ⅰ组糖发酵菌属(Saccharofermentans)的相对丰度极显著升高(P<0.01),试验Ⅱ组和试验Ⅲ组琥珀酸弧菌科UCG-001(Succinivibrionaceae_UCG-001)的相对丰度极显著升高(P<0.01),试验Ⅲ组口腔杆菌属(Oribacterium)的相对丰度显著升高(P<0.05),各试验组Ruminococcus的相对丰度均极显著降低(P<0.01)。
图7 滩羊瘤胃菌群属水平组成柱形图

Fig.7 Histogram of composition of rumen microflora at genus level of Tan sheep

表4 白蒺藜副产物对滩羊瘤胃菌群属水平相对丰度的影响

Table 4 Effects of Tribulus terrestris by-products on relative abundance of rumen microflora at genus level of Tan sheep %

项目
Items
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value
普雷沃氏菌属Prevotella 12.95±9.29 20.12±12.19 32.60±18.55 18.82±14.28 0.133
未分类菌属Unclassified 7.27±2.70 4.32±0.85 4.64±3.03 6.05±3.36 0.232
瘤胃球菌属Ruminococcus 10.92±5.28Aa 2.25±1.77Bb 1.49±1.02Bb 2.90±1.39Bb <0.001
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
2.55±1.06 7.77±5.18 2.82±1.67 5.06±4.76 0.078
毛螺菌科NK3A20群
Lachnospiraceae_NK3A20_group
3.90±1.96 4.70±1.59 2.77±1.41 6.08±3.57 0.119
F082 4.58±2.95 7.69±5.68 2.20±1.93 3.02±1.24 0.053
Muribaculaceae 5.63±3.95 3.19±2.41 4.78±2.05 1.84±0.96 0.084
月形单胞菌属Selenomonas 5.46±3.61 3.63±2.41 2.77±2.29 3.09±2.20 0.336
普雷沃氏菌科UCG-001
Prevotellaceae_UCG-001
4.58±3.19 1.40±0.92 5.81±5.28 2.04±2.03 0.100
梭菌纲UCG-014 Clostridia_UCG-014 3.09±2.24 1.24±0.87 5.59±5.22 2.98±2.20 0.142
解琥珀酸菌属Succiniclasticum 2.10±0.76 3.42±2.56 2.95±2.20 3.24±1.93 0.674
毛螺菌科ND3007群
Lachnospiraceae_ND3007_group
2.28±1.38 3.23±2.39 2.30±1.58 1.43±1.01 0.349
克里斯滕森菌科R-7群
Christensenellaceae_R-7_group
2.68±2.55 2.28±1.81 1.04±0.60 3.33±3.18 0.369
NK4A214_group 1.93±1.08 1.83±0.78 0.85±0.72 1.99±1.70 0.286
粪杆菌真核菌群
Eubacterium_coprostanoligenes_group
0.93±0.35 1.56±1.24 0.56±0.37 1.49±0.58 0.085
口腔杆菌属Oribacterium 1.12±1.02b 1.01±1.01b 0.85±0.31b 2.13±0.49a 0.041
琥珀酸弧菌科UCG-001
Succinivibrionaceae_UCG-001
0.04±0.03Bb 0.12±0.09Bb 3.34±1.73Aa 2.25±1.41Aa <0.001
P-2534-18B5_gut_group 0.29±0.25 0.81±0.74 0.25±0.21 0.61±0.50 0.162
脱硫弧菌属Desulfovibrio 1.02±0.87 1.18±0.56 0.84±0.47 2.19±1.28 0.057
糖发酵菌属Saccharofermentans 0.96±0.85Bb 2.86±1.38Aa 0.17±0.11Bb 0.55±0.49Bb <0.001
其他Others 25.73±9.66 25.41±3.63 21.39±7.36 28.92±5.93 0.346

2.2.4 生物标志物的筛选结果

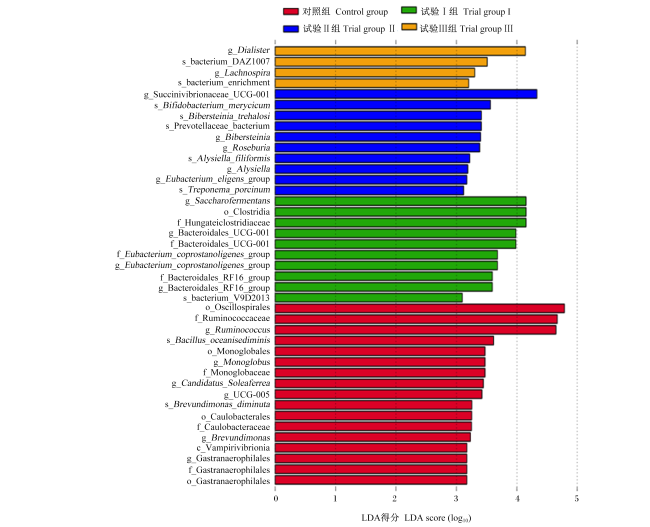
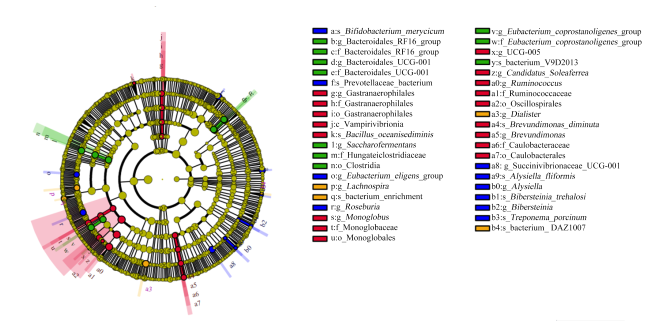
为了进一步确定白蒺藜副产物对滩羊瘤胃菌群的影响,采用线性判别分析效应量(LEfSe)方法,筛选在不同组间具有显著差异的物种(LDA得分>3.0),瘤胃菌群LDA得分分布柱状图和进化分支图分别如图8图9所示。LEfSe分析结果表明,本研究在4组瘤胃液样本中共发现41个显著富集的菌群;对照组瘤胃液样本中显著富集的菌群可作为生物标志物的有o_颤螺菌目(o_Oscillospirales)、f_瘤胃球菌科(f_Ruminococcaceae)、g_瘤胃球菌属(g_Ruminococcus);试验Ⅰ组瘤胃液样本中显著富集的菌群可作为生物标志物的有g_糖发酵菌属(g_Saccharofermentans)、o_梭菌纲(o_Clostridia)、f_亨盖特梭菌科(f_Hungateiclostridiaceae)、g_拟杆菌目UCG-001(g_Bacteroidales_UCG-001)、f_拟杆菌目UCG-001(f_Bacteroidales_UCG-001);试验Ⅱ组瘤胃液样本中显著富集的菌群可作为生物标志物的是g_琥珀酸弧菌科UCG-001(g_Succinivibrionaceae_UCG-001);试验Ⅲ组瘤胃液样本中显著富集的菌群可作为生物标志物的是g_戴阿利斯特杆菌属(g_Dialister)。
图8 瘤胃菌群LDA得分分布柱状图

g_Dialister:g_戴阿利斯特杆菌属;s_bacterium_DAZ1007:s_细菌DAZ1007;g_Lachnospira:g_毛螺菌属;s_bacterium_enrichment:s_富集细菌;g_Succinivibrionaceae_UCG-001:g_琥珀酸弧菌科UCG-001;s_Bifidobacterium_merycicum:s_反刍双歧杆菌;s_Bibersteinia_trehalosi:s_海藻糖比伯斯坦菌;s_Prevotellaceae_bacterium:s_普雷沃氏菌科细菌;g_Bibersteinia:g_比伯斯坦菌属;g_Roseburia:g_罗氏菌属;s_Alysiella_filiformis:s_丝状小链菌;g_Alysiella:g_小链菌属;g_Eubacterium_eligens_group:g_挑剔真杆菌群;s_Treponema_porcinum:s_猪密螺旋体;g_Saccharofermentans:g_糖发酵菌属;o_Clostridia:o_梭菌纲;f_Hungateiclostridiaceae:f_亨盖特梭菌科;g_Bacteroidales_UCG-001:g_拟杆菌目UCG-001;f_Bacteroidales_UCG-001:f_拟杆菌目UCG-001;f_Eubacterium_coprostanoligenes_group:f_粪固醇真杆菌群;g_Eubacterium_coprostanoligenes_group:g_粪固醇真杆菌群;f_Bacteroidales_RF16_group:f_拟杆菌目RF16群;g_Bacteroidales_RF16_group:g_拟杆菌目RF16群;s_bacterium_V9D2013:s_V9D2013细菌;o_Oscillospirales:o_颤螺旋菌目;f_Ruminococcaceae:f_瘤胃球菌科;g_Ruminococcus:g_瘤胃球菌属;s_Bacillus_oceanisediminis:s_居海芽孢杆菌;o_Monoglobales:o_单球菌目;g_Monoglobus:g_单球菌属;f_Monoglobaceae:f_单球菌科;g_Candidatus_Soleaferrea:g_候选铁鞋菌属;g_UCG-005:g_UCG-005属;s_Brevundimonas_diminuta:s_微小短波单胞菌;o_Caulobacterales:o_柄杆菌目;f_Caulobacteraceae:f_柄杆菌科;g_Brevundimonas:g_短波单胞菌属;c_Vampirivibrionia:c_吸血鬼弧菌纲;g_Gastranaerophilales:g_胃厌氧菌目;f_Gastranaerophilales:f_胃厌氧菌目;o_Gastranaerophilales:o_胃厌氧菌目。图9同 the same as Fig.9

Fig.8 Histogram of LDA score distribution of rumen microflora

图9 瘤胃菌群进化分支图

Fig.9 Cladogram of rumen microflora

2.3 瘤胃菌群与瘤胃发酵参数之间的相关性

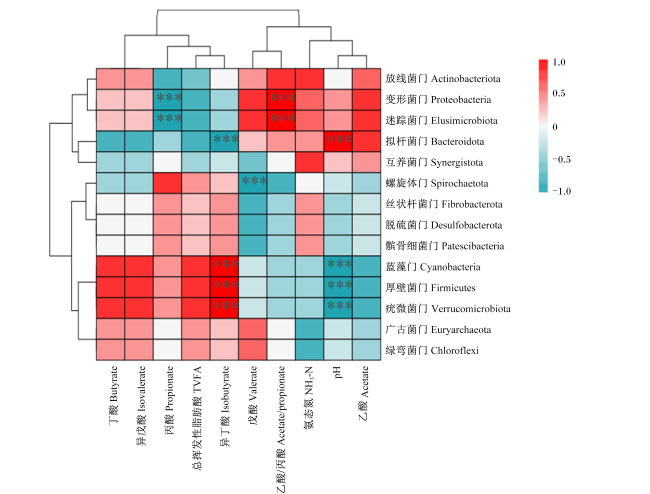
瘤胃菌门与瘤胃发酵参数之间的相关性如图10所示,其中,Proteobacteria和迷踪菌门(Elusimicrobiota)相对丰度与乙酸/丙酸比值呈极显著正相关(P<0.001),与丙酸摩尔比例呈极显著负相关(P<0.001);Bacteroidota相对丰度与pH呈极显著正相关(P<0.001),与异丁酸摩尔比例呈极显著负相关(P<0.001);Firmicutes、疣微菌门(Verrucomicrobiota)和蓝藻门(Cyanobacteria)相对丰度与异丁酸摩尔比例呈极显著正相关(P<0.001),与pH呈极显著正相关(P<0.001);螺旋体门(Spirochaetota)相对丰度与戊酸摩尔比例呈极显著负相关(P<0.001)。
图10 瘤胃菌门与瘤胃发酵参数之间的相关性

“***”表示极显著相关(P<0.001)。下图同。

Fig.10 Correlation between rumen microbial phyla and rumen fermentation parameters

“***” indicates an extremely significant correlation (P<0.001). The same as below.

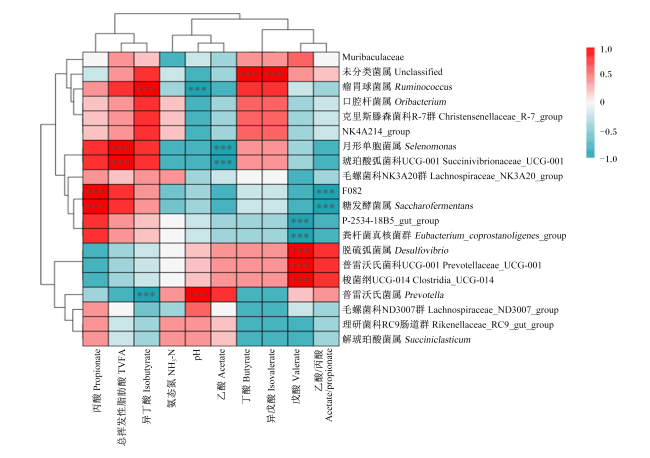
瘤胃菌属与瘤胃发酵参数之间的相关性如图11所示,其中,Unclassified相对丰度与丁酸和异戊酸摩尔比例呈极显著正相关(P<0.001);Ruminococcus相对丰度与异丁酸呈极显著正相关(P<0.001),与pH呈极显著负相关(P<0.001);月形单胞菌属(Selenomonas)和Succinivibrionaceae_UCG-001相对丰度与TVFA浓度呈极显著正相关(P<0.001),与乙酸摩尔比例呈极显著负相关(P<0.001);Saccharofermentans和F082相对丰度与丙酸摩尔比例呈极显著正相关(P<0.001),与乙酸/丙酸比值呈极显著负相关(P<0.001);戊酸摩尔比例与普雷沃氏菌科UCG-001(Prevotellaceae_UCG-001)、梭菌纲UCG-014(Clostridia_UCG-014)和脱硫弧菌属(Desulfovibrio)相对丰度呈极显著正相关(P<0.001),与P-2534-18B5_gut_group和粪杆菌真核菌群(Eubacterium_coprostanoligenes_group)呈极显著负相关(P<0.001);Prevotella相对丰度与pH呈极显著正相关(P<0.001),与异丁酸摩尔比例呈极显著负相关(P<0.001)。
图11 瘤胃菌属与瘤胃发酵参数之间的相关性

Fig.11 Correlation between rumen bacterial genera and rumen fermentation parameters

2.4 瘤胃菌群功能预测分析

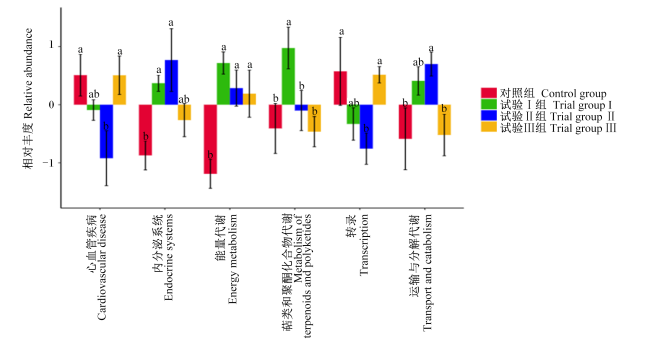
表5可知,在KEGG生物代谢一级通路水平上,各组滩羊瘤胃菌群功能基因主要富集在新陈代谢(metabolism)、遗传信息处理(genetic information processing);在KEGG生物代谢二级通路水平上,各组滩羊瘤胃菌群功能通路丰度较高的有辅因子和维生素的代谢(metabolism of cofactors and vitamins)、氨基酸代谢(amino acid metabolism)和碳水化合物代谢(carbohydrate metabolism);与对照组相比,试验Ⅰ组和试验Ⅱ组的糖链生物合成与代谢(glycan biosynthesis and metabolism)通路的丰度分别升高3.43%和14.52%(P<0.05)。在KEGG二级通路上有5种通路的相对丰度存在显著差异(图12),与对照组相比,试验Ⅰ组内分泌系统(endocrine systems)、萜类和聚酮化合物代谢(metabolism of terpenoids and polyketides)和能量代谢(energy metabolism)的相对丰度显著升高(P<0.05);试验Ⅱ组心血管疾病(cardiovascular disease)、能量代谢和转录(transcription)的相对丰度显著降低(P<0.05),内分泌系统(endocrine systems)和运输与分解代谢(transport and catabolism)的相对丰度显著升高(P<0.05);试验Ⅲ组仅能量代谢的相对丰度显著升高(P<0.05)。
表5 基于KEGG数据库的滩羊瘤胃菌群功能通路丰度(二级通路排名前10)

Table 5 Abundance of functional pathways in rumen microbiota of Tan sheep based on KEGG database (top 10 secondary pathways)

一级通路
Primary pathways
二级通路
Secondary pathways
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value


新陈代谢
Metabolism
辅因子和维生素的代谢
Metabolism of cofactors and
vitamins
125 068.77
±5 913.35
126 437.53
±3 142.42
126 837.09
±5 202.99
123 600.74
±5 008.57
0.665
氨基酸代谢
Amino acid metabolism
137 570.405
±3 766.90
134 091.32
±4 957.99
133 952.41
±1 551.05
134 273.11
±6 783.77
0.493
碳水化合物代谢
Carbohydrate metabolism
129 172.75
±4 259.84
126 401.45
±4 548.73
126 136.05
±3 660.01
125 149.25
±7 440.52
0.584
其他氨基酸代谢
Metabolism of other amino acids
85 867.89
±1 086.44
84 971.99
±1 513.37
84 872.48
±2 355.34
83 894.37
±1 753.65
0.304
其他次级代谢产物的生物合成
Biosynthesis of other secondary
metabolites
79 716.02
±4 088.85
79 727.20
±2 868.97
80 855.91
±2 581.50
77 507.39
±2 591.30
0.325
糖链的生物合成与代谢
Glycan biosynthesis and metabolism
64 720.34
±8 969.81b
66 940.56
±3 276.08ab
74 120.25
±5 347.53a
60 916.63
±9 259.03b
0.032
全局地图和概览
Global and overview maps
74 318.79
±1 409.12
73 146.00
±2 509.76
72 478.45
±1 680.46
73 579.39
±3 640.07
0.630
能量代谢
Energy metabolism
57 359.06
±1 345.57
58 256.82
±1 392.71
58 172.07
±622.79
57 379.19
±1 342.34
0.428


遗传信息处理
Genetic
information
processing
复制和修复
Replication and repair
71 369.96
±876.40
71 827.35
±588.57
72 517.78
±761.87
71 742.80
±859.38
0.113
翻译Translation 42 741.55
±477.72
42 501.36
±240.41
42 283.78
±385.10
42 730.28
±418.81
0.169
图12 基于KEGG二级通路的滩羊瘤胃菌群功能通路相对丰度差异分析

数据柱标注相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Fig.12 Analysis of differences in relative abundances of functional pathways in rumen microbiota of Tan sheep based on KEGG secondary pathways

Data columns with the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05).

3 讨论

3.1 白蒺藜副产物对滩羊瘤胃发酵参数的影响

反刍动物的瘤胃发酵参数是衡量瘤胃消化功能、健康状况以及内环境稳定性的重要指标[13]。其中,pH是反映瘤胃健康状况的直观指标,反刍动物维持正常瘤胃生理功能的pH范围为5.5~7.0[14]。本试验中,瘤胃液pH为6.31~6.74,处于正常范围内,表明白蒺藜副产物的添加不会破坏瘤胃内环境的稳态。NH3-N浓度是瘤胃内环境稳定性的关键指标,适宜的NH3-N浓度有利于瘤胃发酵。若NH3-N浓度过高,瘤胃菌群从氮源中释放氨的速率会超过微生物合成蛋白质的速率,就会增加瘤胃氮循环中氮的损失;而NH3-N浓度过低,则会限制纤维素分解酶的活性[15]。研究表明,瘤胃内适宜的NH3-N浓度为6~30 mg/dL[16]。冯志华[9]研究显示,蒺藜皂苷的添加可降低体外瘤胃发酵液中NH3-N浓度。然而,在本试验中,当白蒺藜副产物的添加量为10%和15%时,瘤胃液中NH3-N浓度有所提高,但仍处于适宜范围内。这可能与白蒺藜副产物中较高的蛋白质含量(18.44%)有关,这些蛋白质在瘤胃中被微生物分解后会释放NH3-N,从而导致NH3-N浓度升高。黄旺洲等[17]研究表明,较高的pH和NH3-N表达有利于纤维素分解菌的生长,进而提高纤维降解速率,这与本试验研究结果一致。
瘤胃是反刍动物消化活动的主要场所,瘤胃菌群通过发酵碳水化合物产生VFA,其中乙酸、丙酸、丁酸占TVFA的95%以上[18]。在本试验中,与对照组和试验Ⅰ组相比,试验Ⅱ组和试验Ⅲ组的瘤胃液TVFA浓度极显著降低,其中乙酸、丙酸和丁酸的摩尔比例之和占到TVFA的98%以上,与上述研究结果相符。乙酸是肝脏从头合成脂肪酸的主要碳源,丁酸是瘤胃和结肠上皮主要的能量来源,而丙酸是反刍动物体内主要的糖异生物质[19]。研究表明,丙酸的能量利用效率最高(100%),其次是丁酸(78%),乙酸最低(62%)[20]。因此,瘤胃发酵中丙酸比例的增加以及乙酸和丁酸比例的减少,能够显著提高反刍动物的能量利用效率[21]。冯志华[9]研究显示,添加0.30~0.60 g/L的蒺藜皂苷后,丙酸摩尔比例显著提高,而乙酸摩尔比例和乙酸/丙酸比值显著降低。在本试验中,添加5%的白蒺藜副产物后,丙酸摩尔比例相较对照组提高9.42%,乙酸/丙酸比值降低7.03%,表明5%的白蒺藜副产物可使瘤胃发酵模式向丙酸型转化,这与上述研究结果一致。然而,当白蒺藜副产物的添加量超过5%时,丙酸摩尔比例极显著下降,乙酸/丙酸比值则极显著升高,Azarm等[22]的研究得出了一致的结果,推测可能是白蒺藜中的某些化学物质抑制酸的产生。瘤胃中的异丁酸和异戊酸属于支链脂肪酸,研究表明,支链脂肪酸能够有效促进纤维素分解菌的生长,从而提高纤维素在瘤胃中的降解率[23]。在本试验中,添加白蒺藜副产物后,丁酸、异丁酸、戊酸和异戊酸的摩尔比例呈不同程度降低,这进一步支持了白蒺藜副产物可能通过抑制酸的产生来影响瘤胃发酵模式。综上所述,5%的白蒺藜副产物对瘤胃发酵具有积极影响,能够优化瘤胃内的发酵环境,提高反刍动物对营养物质的利用效率;然而,当添加量超过5%时,可能对瘤胃发酵产生不利影响,需谨慎调整添加量。

3.2 白蒺藜副产物对滩羊瘤胃菌群多样性的影响

16S rDNA高通量测序技术可以快速、全面了解不同饲养方式对瘤胃菌群的影响。Alpha多样性分析可以反映样本内微生物群落的丰富度和多样性,可通过Ace指数、Chao1指数、Shannon指数和Simpson指数进行综合评估。Ace指数和Chao1指数用于估计样本中微生物群落中OTUs的数量,反映微生物群落的丰富度;Shannon指数和Simpson指数用于估算样本中微生物群落的多样性,与微生物群落多样性呈正相关。在本试验中,各组的覆盖度均在0.98以上,表明样品采集足以反映滩羊瘤胃菌群的真实情况。然而,各组间Alpha多样性指数的差异均未达到显著水平,说明在本试验条件下添加白蒺藜副产物并未显著改变滩羊瘤胃菌群的丰富度和多样性。为了进一步分析瘤胃菌群特征,采用Bray-Curtis距离矩阵进行PCoA和NMDS,结果显示,stress值为0.107,小于0.2,表明菌群多样性检测数据具有较高的准确性。在OTUs水平上,对照组和试验Ⅰ组的分布距离较近,表明它们在某些菌群特征上较为相似,可能难以通过简单的线性或非线性方法完全区分。相比之下,试验Ⅱ组和试验Ⅲ组的分布较为独立,试验Ⅱ组主要分布在PCo1/NMDS1的正值区域,而试验Ⅲ组则主要分布在PCo2/NMDS2的负值区域,这表明试验Ⅱ组和试验Ⅲ组在某些菌群特征上与其他组存在显著差异。

3.3 白蒺藜副产物对滩羊瘤胃菌群结构的影响

瘤胃微生物对反刍动物的消化和吸收营养物质起着至关重要的作用,这些微生物包括原虫、细菌和真菌,共同形成了一个复杂的生态环境[24]。瘤胃微生物的种类和比例直接影响反刍动物对营养物质的利用效率[25]。在反刍动物瘤胃内,Firmicutes和Bacteroidota是占主导地位的菌群,它们在纤维素降解和短链脂肪酸(如乙酸、丙酸和丁酸)的生成中发挥关键作用,为宿主提供能量[24]。郭帅等[26]研究显示,放牧与舍饲模式下,滩羊瘤胃内的优势菌门均为Bacteroidota、Firmicutes和Proteobacteria。在本试验中,滩羊瘤胃菌群中Firmicutes、Bacteroidota和Proteobacteria的相对丰度排在前3,占总相对丰度的91.96%以上,与上述研究结果一致。Bacteroidota通过降解纤维素、木聚糖、淀粉等复杂碳水化合物,产生乙酸、异戊酸和琥珀酸[27],在有机物转换和非纤维类碳水化合物降解中发挥重要作用[28]。Firmicutes中包含有大量纤维素分解菌属,可有效促进纤维分解,并通过发酵过程产生乙酸、丁酸和乳酸等代谢产物。Proteobacteria包含多种病原菌,可能对宿主健康产生不利影响[29]。在本试验中,与对照组相比,添加10%白蒺藜副产物后,Bacteroidota和Proteobacteria的相对丰度分别显著升高50.76%和127.79%,而Firmicutes的相对丰度显著降低31.56%。这表明白蒺藜副产物可能通过改变菌群结构,促进Bacteroidota的增殖,同时抑制Firmicutes的增殖,且添加5%白蒺藜副产物时可抑制Proteobacteria的增殖,减少有害菌的产生。
RuminococcusPrevotella在瘤胃菌群中发挥着不可或缺的作用,参与纤维素、半纤维素和蛋白质的消化代谢,并与其他消化道细菌协同作用,促进营养物质的生物降解[30]。本试验中,PrevotellaRuminococcus和Unclassified为滩羊瘤胃菌群中的优势菌属,占总相对丰度的26.69%以上。Prevotella作为主要的共生菌,广泛存在于健康的反刍动物瘤胃中,不仅可以改善瘤胃稳态,还能降低胆固醇及肝脂的形成[31]。此外,Prevotella在降解蛋白质、淀粉等营养物质的过程中也起着至关重要的作用[32]。本试验中,虽然4组间Prevotella的相对丰度差异不显著,但与对照组相比,添加白蒺藜副产物有提高其相对丰度的趋势,表明添加白蒺藜副产物可能有利于促进饲粮中淀粉和蛋白质的利用。Ruminococcus是重要的产乙酸菌,能够利用纤维素、木聚糖和纤维二糖等发酵底物,产生乙酸、甲酸或乳酸,并释放氢气和二氧化碳[33]。在本试验中,与对照组相比,试验Ⅱ组和试验Ⅲ组Ruminococcus的相对丰度极显著降低;此外,与试验Ⅰ组相比,试验Ⅱ组和试验Ⅲ组Saccharofermentans的相对丰度也呈极显著降低。这可能是由于白蒺藜副产物中的黄酮类物质(如山奈酚、槲皮素和异鼠李素等[34])具有抗炎、抗菌和抗氧化的特性,能够与蛋白质结合形成难溶性复合物,从而抑制RuminococcusSaccharofermentans对营养物质的获取和利用,导致两者相对丰度下降。Selenomonas通过脱羧作用将琥珀酸转化为丙酸[35],并发酵乳酸产生丙酸,因此被称为丙酸生成菌[36]。解琥珀酸菌属(Succiniclasticum)虽不直接降解淀粉,但能高效利用其他微生物降解淀粉产生的主要中间产物——乳酸,将其转化为丙酸,此代谢途径有助于减少用于产甲烷的氢源,从而降低甲烷排放[37-38]。本试验中,4组之间SucciniclasticumSelenomonas的相对丰度差异不显著,但随着白蒺藜副产物添加量的增加,Selenomonas的相对丰度分别降低33.51%、49.27%和43.41%。这与添加5%白蒺藜副产物时丙酸摩尔比例增加,而添加量超过5%后丙酸摩尔比例极显著降低的结果一致。
LEfSe分析显示,4组间共有41个存在显著差异的物种,试验Ⅱ组和试验Ⅲ组中显著富集的菌群较少,且LDA得分较低,表明其微生物组成相对保守或与其他组重叠。对照组中显著富集的菌群有o_Oscillospirales、f_Ruminococcaceae、g_Ruminococcus,这些菌群通过分解纤维素产生短链脂肪酸,为宿主提供能量,表明对照组可能与能量代谢功能密切相关;试验Ⅰ组(添加5%白蒺藜副产物)中显著富集的菌群有g_Saccharofermentans、o_Clostridia、f_Hungateiclostridiaceae、g_Bacteroidales_UCG-001、f_Bacteroidales_UCG-001,这些菌群参与多糖降解,反映了碳水化合物代谢特征的差异;试验Ⅱ组中显著富集的菌群为g_Succinivibrionaceae_UCG-001,其能够发酵淀粉和葡萄糖,产生琥珀酸和乙酸,与上述添加10%白蒺藜副产物时Bacteroidota相对丰度的增加结果一致;试验Ⅲ组中显著富集的菌群为g_Dialister,其相对丰度与强直性脊柱炎的疾病活动评分呈正相关。已有研究表明,绵羊食用蒺藜和紫花苜蓿的混合物约11 d后出现肝源性光敏[39],这与添加15%的白蒺藜副产物导致炎症相关菌群富集的结果一致,但其作用机制尚不清楚,可能与其添加量较高有关。因此,在反刍动物饲粮中添加白蒺藜副产物时,需谨慎控制其添加量,以避免可能的负面影响。综上所述,滩羊饲粮中白蒺藜副产物的添加量控制在5%为宜。

3.4 滩羊瘤胃菌群与瘤胃发酵参数之间的相关性

瘤胃菌群的组成和结构复杂多样,是影响瘤胃发酵功能的重要因素。饲粮类型、结构及饲喂方式均能够显著影响反刍动物瘤胃菌群的种类与数量[40]。对瘤胃发酵参数与瘤胃菌门和菌属相对丰度进行的Pearson相关性分析显示,在参与分析的14个菌门中,有7个菌门的相对丰度与瘤胃发酵参数存在极显著相关;在参与分析的20个菌属中,有12个菌属的相对丰度与瘤胃发酵参数存在极显著相关,其中Ruminococcus相对丰度与异丁酸呈极显著正相关。根据相关性分析结果推测,添加适量的白蒺藜副产物可促进短链脂肪酸生成和瘤胃菌群中有益菌的增殖,但添加量过高时会抑制乙酸、丙酸和丁酸的生成,从而对反刍动物的消化和代谢产生影响。

3.5 白蒺藜副产物对滩羊瘤胃KEGG代谢通路的影响

本研究利用PICRUST 2对滩羊的瘤胃细菌基因组测序信息进行KEGG通路比对,以预测瘤胃菌群的代谢功能。在KEGG生物代谢一级通路水平上,各组滩羊瘤胃菌群功能基因主要富集在新陈代谢和遗传信息处理,这表明瘤胃菌群在代谢和基因表达调控方面具有重要作用;在KEGG生物代谢二级通路水平上,各组滩羊瘤胃菌群功能通路丰度较高的为辅因子和维生素的代谢、氨基酸代谢和碳水化合物代谢,这些通路与瘤胃菌群的营养代谢和宿主健康密切相关。此外,与对照组相比,试验Ⅰ组和试验Ⅲ组的糖链生物合成与代谢功能通路丰度分别显著升高3.43%和14.52%,这表明添加5%和10%的白蒺藜副产物可能改善了能量代谢相关功能,使微生物在宿主体内能更有效地利用糖链作为能量来源,或通过糖链与宿主细胞进行信号传递,从而影响瘤胃的生理功能。
在KEGG二级通路水平上,有5种代谢通路相对丰度组间存在显著差异。与对照组相比,饲粮中添加5%和10%白蒺藜副产物时心血管疾病和转录的相对丰度降低。心血管疾病功能相对丰度的降低可能反映了白蒺藜副产物对心血管疾病的保护作用。研究表明,蒺藜总皂苷能有效保护高血脂症家兔主动脉内皮细胞和动脉内皮细胞,有助于干预动脉粥样硬化早期病变[41];同时,白蒺藜中的黄酮类物质可通过抗氧化、抗炎、抗血小板聚集等机制,降低心血管疾病的发病风险和严重程度[42]。此外,与对照组相比,饲粮中添加5%和10%白蒺藜副产物时内分泌系统和运输与分解代谢的相对丰度升高。已有研究表明,饲喂蒺藜草可提高几内亚鸡的产蛋率[43];蒺藜皂苷可促进雄性大鼠发情[44],并增加衰老小鼠附睾精子浓度和精子活力[45]。这些研究提示,白蒺藜副产物改善内分泌系统的功能可能与调节激素水平有关;而运输与分解代谢相对丰度的提高说明白蒺藜副产物可能通过促进营养物质的运输和分解代谢,提高反刍动物对营养物质的利用效率。与对照组相比,饲粮中添加5%白蒺藜副产物时,萜类和聚酮化合物代谢和能量代谢的相对丰度显著升高,且添加5%白蒺藜副产物时能量代谢的相对丰度是4组中最高的,这与Bacteroidota、PrevotellaSaccharofermentans相对丰度的增加有关,上述细菌可通过发酵碳水化合物产生短链脂肪酸,调节宿主的代谢网络,从而影响萜类和聚酮化合物的代谢。

4 结论

综上所述,饲粮中添加5%的白蒺藜副产物对滩羊瘤胃发酵具有积极影响,可使瘤胃发酵模式向丙酸型转化,且不会对瘤胃菌群结构和多样性产生负面影响。
[1]
孙宇, 杨文慧, 郭延生. 中草药调控反刍动物瘤胃菌群代谢的研究进展[J]. 动物营养学报, 2025, 37(2):771-777.

DOI

SUN Y, YANG W H, GUO Y S. Research progress on regulation of rumen microbiota metabolism in ruminants by traditional Chinese herbs[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):771-777. (in Chinese)

DOI

[2]
王冰姿. 蒺藜叶化学成分及生物活性研究[D]. 硕士学位论文. 长春: 吉林大学, 2023.

WANG B Z. Study on the chemical constituents and bio-activitiesof the leaves of Tribulus terrestris L.[D]. Master’s Thesis. Changchun: Jilin University, 2023. (in Chinese)

[3]
SAEED M, MUNAWAR M, BI J B, et al. Promising phytopharmacology,nutritional potential,health benefits,and traditional usage of Tribulus terrestris L. herb[J]. Heliyon, 2024, 10(4):e25549.

DOI

[4]
POKRYWKA A, OBMIŃSKI Z, MALCZEWSKA-LENCZOWSKA J, et al. Insights into supplements with Tribulus terrestris used by athletes[J]. Journal of Human Kinetics, 2014,41:99-105.

[5]
DUHAN A, CHAUHAN B M, PUNIA D. Nutritional value of some non-conventional plant foods of India[J]. Plant Foods for Human Nutrition, 1992, 42(3):193-200.

PMID

[6]
MEENA K A, SHARMA K, JAIN V, et al. Physicochemical and preliminary phytochemical studies on the fruit of Tribulus terrestries Linn[J]. Research Journal of Science and Technology, 2010, 2(2):31-33.

[7]
纪思宇, 申枢, 李瑞海, 等. 不同产地蒺藜药材中氨基酸成分比较分析[J]. 实用药物与临床, 2014, 17(2):205-208.

JI S Y, SHEN S, LI R H, et al. Comparation and analysis of the content of amino acid in Tribulus terrestris herbs from different origins[J]. Practical Pharmacy and Clinical Remedies, 2014, 17(2):205-208. (in Chinese)

[8]
张悦. 蒺藜茎叶化学成分及生物活性研究[D]. 硕士学位论文. 长春: 吉林大学, 2019.

ZHANG Y. Study on the chemical constituents and bio-activities of the stems and leaves of Tribulus terrestris L.[D]. Master’s Thesis. Changchun: Jilin University, 2019. (in Chinese)

[9]
冯志华. 蒺藜皂苷对奶牛瘤胃发酵、甲烷产量、抗氧化功能及免疫功能的影响[D]. 博士学位论文. 保定: 河北农业大学, 2013.

FENG Z H. Effects of Tribulus terrestris saponins on rumen fermentation,methane production,antioxidant function and immune function in dairy cows[D]. Ph.D.Thesis. Baoding: Hebei Agricultural University, 2013. (in Chinese)

[10]
李瑞珍, 李翾晟, 王泰露, 等. 白蒺藜副产物对滩羊生长性能、消化代谢、屠宰性能及肉品质的影响[J]动物营养学报, 2025, 37(12):8466-8478.

DOI

LI R Z, LI X S, WANG T L, et al. Effects of Tribulus terrestris by-products on growth performance, digestive metabolism, slaughter performance and meat quality of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2025, 37(12):8466-8478. (in Chinese)

[11]
许丽卫, 耿梅梅, 陈闻, 等. 气相色谱-质谱联用法测定瘤胃液中的甲酸和其他6种挥发性脂肪酸[J]. 动物营养学报, 2021, 33(2):1145-1152.

DOI

XU L W, GENG M M, CHEN W, et al. Determination of formic acid and other six volatile fatty acids in rumen fluid by gas chromatography-mass spectrometry method[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):1145-1152. (in Chinese)

[12]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(增刊1):37.

FENG Z C, GAO M. Improvement of the method for the determination of ammonia-nitrogen content in rumen fluid by colorimetry[J]. Animal and Feed Science, 2010, 31(Suppl.1):37. (in Chinese)

[13]
李娅楠. 乳杆菌与地衣芽孢杆菌复合微贮对稻草营养价值影响及机理研究[D]. 硕士学位论文. 银川: 宁夏大学, 2022.

LI Y N. Effect and mechanism research of compound silage of Lactobacillus and Bacillus licheniformis on nutritional value of rice straw[D]. Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[14]
AHMED E, FUKUMA N, HANADA M, et al. The efficacy of plant-based bioactives supplementation to different proportion of concentrate diets on methane production and rumen fermentation characteristics in vitro[J]. Animals, 2021, 11(4):1029.

DOI

[15]
CORREDDU F, NUDDA A, BATTACONE G, et al. Effects of grape seed supplementation,alone or associated with linseed,on ruminal metabolism in Sarda dairy sheep[J]. Animal Feed Science and Technology, 2015,199:61-72.

[16]
YU J K, CAI L Y, ZHANG J C, et al. Effects of thymol supplementation on goat rumen fermentation and rumen microbiota in vitro[J]. Microorganisms, 2020, 8(8):1160.

DOI

[17]
黄旺洲, 张生伟, 滚双宝, 等. 高效纤维素分解菌群及锯末对动物粪便降解纤维素酶活与除臭效果的影响[J]. 农业环境科学学报, 2016, 35(1):186-194.

HUANG W Z, ZHANG S W, GUN S B, et al. Effects of cellulose-decomposing microbes and sawdust on cellulose enzyme activity and odor during animal waste degradation[J]. Journal of Agro-Environment Science, 2016, 35(1):186-194. (in Chinese)

[18]
CHENG Y N, TIAN S L, CHEN Y, et al. Structural characterization and in vitro fermentation properties of polysaccharides from Polygonatum cyrtonema[J]. International Journal of Biological Macromolecules, 2024, 258(Pt 1):128877.

DOI

[19]
WANG J, ZHANG Z D, LIU H H, et al. Evaluation of gas production,fermentation parameters,and nutrient degradability in different proportions of sorghum straw and ammoniated wheat straw[J]. Fermentation, 2022, 8(8):415.

DOI

[20]
KITTELMANN S, SEEDORF H, WALTERS W A, et al. Simultaneous amplicon sequencing to explore co-occurrence patterns of bacterial,archaeal and eukaryotic microorganisms in rumen microbial communities[J]. PLoS One, 2013, 8(2):e47879.

DOI

[21]
KNAPP J R, LAUR G L, VADAS P A, et al. Invited review:enteric methane in dairy cattle production:quantifying the opportunities and impact of reducing emissions[J]. Journal of Dairy Science, 2014, 97(6):3231-3261.

DOI

[22]
AZARM A, AYOOBI F, ZARE-BIDAKI M, et al. Antibacterial and antibiofilm activities of Tribulus terrestris methanolic extract against Streptococcus mutans,Streptococcus sobrinus,and Lactobacillus acidophilus:an in vitro study[J]. Dental Research Journal, 2024,21:57.

[23]
DEWHURST R J, WADHWA D, BORGIDA L P, et al. Rumen acid production from dairy feeds.1.Effects on feed intake and milk production of dairy cows offered grass or corn silages[J]. Journal of Dairy Science, 2001, 84(12):2721-2729.

DOI

[24]
MAO H L, ZHANG Y F, YUN Y, et al. Weaning age affects the development of the ruminal bacterial and archaeal community in Hu lambs during early life[J]. Frontiers in Microbiology, 2021,12:636865.

[25]
MAHMOUDI-ABYANE M, ALIPOUR D, MOGHIMI H R. Effects of different sources of nitrogen on performance,relative population of rumen microorganisms,ruminal fermentation and blood parameters in male feedlotting lambs[J]. Animal, 2020, 14(7):1438-1446.

DOI

[26]
郭帅, 杨慧超, 李瑞国, 等. 放牧与舍饲模式对滩羊肉品质、瘤胃环境及菌群结构的影响[J]. 西南农业学报, 2023, 36(8):1798-1807.

GUO S, YANG H C, LI R G, et al. Effects of grazing and housing feeding patterns on meat quality,rumen environment and microbiota structure of Tan sheep[J]. Southwest China Journal of Agricultural Sciences, 2023, 36(8):1798-1807. (in Chinese)

[27]
陈鲁豫. 瘤胃优势菌群调控青年奶山羊瘤胃发酵及脂质代谢的机理[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2022.

CHEN L Y. The mechanism of rumen dominant flora regulating rumen fermentation and lipid metabolism in young dairy goats[D]. Master’s Thesis. Yangling: Northwest A and F University, 2022. (in Chinese)

[28]
LV F, WANG X J, PANG X, et al. Effects of supplementary feeding on the rumen morphology and bacterial diversity in lambs[J]. PeerJ, 2020,8:e9353.

[29]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

DOI

[30]
SHAO P Y, SHA Y Z, LIU X, et al. Supplementation with Astragalus root powder promotes rumen microbiota density and metabolome interactions in lambs[J]. Animals, 2024, 14(5):788.

DOI

[31]
CHAMBERS E S, VIARDOT A, PSICHAS A, et al. Effects of targeted delivery of propionate to the human colon on appetite regulation,body weight maintenance and adiposity in overweight adults[J]. Gut, 2015, 64(11):1744-1754.

DOI

[32]
THOETKIATTIKUL H, MHUANTONG W, LAOTHANACHAREON T, et al. Comparative analysis of microbial profiles in cow rumen fed with different dietary fiber by tagged 16S rRNA gene pyrosequencing[J]. Current Microbiology, 2013, 67(2):130-137.

DOI PMID

[33]
常帅飞, 程雨辰, 任文义, 等. 不同纤维源富集奶牛瘤胃纤维降解菌多样性分析[J]. 动物营养学报, 2024, 36(11):7068-7080.

DOI

CHANG S F, CHENG Y C, REN W Y, et al. Diversity analysis of rumen fiber-degrading bacteria in dairy cows enriched with different fiber sources[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7068-7080. (in Chinese)

DOI

[34]
XU D D, WANG Y, GUO W J, et al. LC-MS-based multiomics analysis of brain tissue for the evaluation of the anti-ischemic stroke potential of Tribulus terrestris L. fruit extract in MCAO rats[J]. Arabian Journal of Chemistry, 2022, 15(11):104297.

DOI

[35]
RAN T, TANG S X, YU X, et al. Diets varying in ratio of sweet sorghum silage to corn silage for lactating dairy cows:feed intake,milk production,blood biochemistry, ruminal fermentation,and ruminal microbial community[J]. Journal of Dairy Science, 2021, 104(12):12600-12615.

DOI

[36]
赵志伟. 牦牛乳品质及其母子瘤胃微生态的氨基酸和矿物质营养调控效应研究[D]. 硕士学位论文. 兰州: 兰州大学, 2021.

ZHAO Z W. Research on the effects of nutritional regulation of amino acids and minerals for milk quality and ruminal ecosystem in lactating yaks and its calves[D]. Master’s Thesis. Lanzhou: Lanzhou University, 2021. (in Chinese)

[37]
BI Y L, ZENG S Q, ZHANG R, et al. Effects of dietary energy levels on rumen bacterial community composition in Holstein heifers under the same forage to concentrate ratio condition[J]. BMC Microbiology, 2018, 18(1):69.

DOI PMID

[38]
WANG Z, YU Y A, LI X Y, et al. Fermented soybean meal replacement in the diet of lactating Holstein dairy cows:modulated rumen fermentation and ruminal microflora[J]. Frontiers in Microbiology, 2021,12:625857.

[39]
ASLANI M R, MOVASSAGHI A R, MOHRI M, et al. Experimental Tribulus terrestris poisoning in sheep:clinical,laboratory and pathological findings[J]. Veterinary Research Communications, 2003, 27(1):53-62.

[40]
姜鑫, 崔梓琪, 刘鑫, 等. 发酵玉米蛋白粉对犊牛生长、血液指标、瘤胃菌群和营养物质消化的影响[J]. 东北农业大学学报, 2019, 50(2):46-55.

JIANG X, CUI Z Q, LIU X, et al. Effect of fermented corn gluten meal on growth,blood indices,ruminal flora and nutrient digestibility in calves[J]. Journal of Northeast Agricultural University, 2019, 50(2):46-55. (in Chinese)

[41]
张颖, 张波, 殷惠军, 等. 蒺藜总皂苷对家兔高脂血症及主动脉内膜早期粥样硬化病变的影响[J]. 中西医结合心脑血管病杂志, 2006, 4(2):126-128.

ZHANG Y, ZHANG B, YIN H J, et al. Effect of GSTT on hyperlipemia and early atherosclerotic lesion of aortic intima in rabbits[J]. Chinese Journal of Integrative Medicine on Cardio/Cerebrovascular Disease, 2006, 4(2):126-128. (in Chinese)

[42]
ABDULQAWI L N A, QUADRI S A. Evaluation of antibacterial and antioxidant activities of Tribulus terrestris L. fruits[J]. Research Journal of Pharmacy and Technology, 2021, 14(1):331-336.

DOI

[43]
NIKOLOVA M, GRIGOROVA S, ABADJIEVA D, et al. Investigation of the effect of Tribulus terrestris extract on some characteristics of the reproductive capacity of guinea fowl[J]. Biotechnology in Animal Husbandry, 2010, 26(3/4):259-266.

DOI

[44]
梁志健, 严家荣, 陈桂煌, 等. 蒺藜淫羊藿复合物对大鼠性功能及精子活力的影响[J]. 中国比较医学杂志, 2022, 32(1):62-67.

LIANG Z J, YAN J R, CHEN G H, et al. Effect of Tribulus terrestris and the epimedium complex on sexual function and sperm viability in male rats[J]. Chinese Journal of Comparative Medicine, 2022, 32(1):62-67. (in Chinese)

[45]
朱辛为, 田洪艳, 李质馨, 等. 蒺藜皂苷对衰老小鼠睾丸生精功能影响[J]. 中国公共卫生, 2012, 28(5):636-637.

ZHU X W, TIAN H Y, LI Z X, et al. Effects of caltrop saponin on spermatogenic function of testis in aging mice[J]. Chinese Journal of Public Health, 2012, 28(5):636-637. (in Chinese)

Outlines

/