RESEARCH PAPER

Metabolomics-Based Study on Plasma Metabolites and Metabolic Pathways in Dairy Cows with Different Milk Protein Yields

  • GAO Yuan ,
  • TANG Yidan * ,
  • ZHANG Shufan ,
  • HAN Zhaoyu , **
Expand
  • College of Animal Science and Technology, Nanjing Agricultural University, Nanjing 210095, China
** professor, E-mail:

* Contributed equally

Received date: 2025-06-30

  Online published: 2026-02-12

Abstract

This experiment aimed to investigate the differences in plasma metabolites, hormones, and biochemical indices among dairy cows with different milk protein yields, in order to evaluate the roles of these biochemical markers in milk protein synthesis. Based on milk protein yield, cows were divided into a high milk protein yield group (HMP group, monthly average milk protein yield>41.09 kg) and a low milk protein yield group (LMP group, monthly average milk protein yield<36.16 kg). Three Holstein dairy cows with similar lactation stage, body condition, and parity were selected for each group. Plasma biochemical indices, hormone profiles, and metabolomic data were measured. The results showed that the concentrations of total cholesterol (TC), high-density lipoprotein (HDL) and low-density lipoprotein (LDL) and the activity of alanine aminotransferase (ALT) in plasma of the HMP group were extremely significantly decreased (P<0.01), and the content of urea nitrogen(UN) in plasma of the HMP group was significantly decreased (P<0.05), indicating that dairy cows with high milk protein yield had better liver metabolic efficiency and nitrogen utilization ability. Plasma metabolomics analysis results revealed that 145 and 157 differential metabolites were identified in the positive and negative ion modes, respectively [P<0.05, variable importance in projection (VIP)>1]. Under the positive ion mode, metabolites such as dodecanoic acid and 2-phosphoglycerate were significantly enriched in the HMP group, whereas metabolites including lyso-phosphatidylcholine 18∶2 (LPC 18∶2) and glycerophosphocholine were significantly enriched in the LMP group. The concentrations of prolactin (PRL) and estriol (E3) in plasma of the HMP group were significantly higher than those of the LMP group (P<0.05), while the concentration of growth hormone (GH) in plasma of the HMP group was significantly lower than that of the LMP group (P<0.05). KEGG pathway enrichment analysis indicated that glycosphingolipid metabolism, alpha-linolenic acid metabolism, and sphingolipid metabolism pathways were significantly enriched. In conclusion, the low milk protein yield dairy cows have increased liver metabolic load due to overactivation of glycerophospholipid metabolism, while the high milk protein yield dairy cows have a significant advantage in milk protein synthesis due to the synergistic effect of efficient lipid metabolism, optimized nitrogen utilization and specific hormone regulatory network, which may be the key metabolic basis for the difference in milk protein synthesis between the low and high milk protein yield dairy cows.

Cite this article

GAO Yuan , TANG Yidan , ZHANG Shufan , HAN Zhaoyu . Metabolomics-Based Study on Plasma Metabolites and Metabolic Pathways in Dairy Cows with Different Milk Protein Yields[J]. Chinese Journal of Animal Nutrition, 2026 , 38(2) : 1355 -1367 . DOI: 10.12418/CJAN2026.108

牛乳中包含碳水化合物、蛋白质、脂肪、水分、维生素、矿物质等营养成分,其中蛋白质含量是评价牛乳质量的重要指标。乳蛋白主要有2个来源,一个是乳腺细胞所分泌的酪蛋白和乳清蛋白,一个是直接来自血液的免疫球蛋白和白蛋白,而乳腺细胞分泌的蛋白质占乳蛋白的绝大部分[1-2],其中酪蛋白占比约78%,乳清蛋白占比约12%[3]。乳腺细胞以血液中的氨基酸为底物,在糖基转移酶、磷酸激酶等相关酶和ATP的作用下,在粗面内质网内进行翻译,然后被运送到高尔基体进行修饰加工,最后胞吐至腺泡腔内[4]。血浆中的葡萄糖通过乳腺细胞膜上的葡萄糖转运蛋白进入细胞,通过糖酵解和三羧酸循环产生大量ATP,为乳蛋白合成供能[5]
调控乳蛋白合成的信号通路主要有调控转录的Janus激酶-信号转导和转录激活因子(JAK-STAT)信号通路、调控蛋白质翻译的哺乳动物雷帕霉素靶蛋白(mTOR)信号通路和感应体内氨基酸水平的一般性调控阻遏蛋白激酶2(GCN2)-真核生物起始因子2α(GCN2-eIF2α)信号通路。血浆中催乳素(PRL)、胰岛素样生长因子-1(IGF-1)、生长激素(GH)等激素均会通过GCN2-eIF2α信号通路调控奶牛乳腺中乳蛋白相关基因的表达[6-8],而必需氨基酸、葡萄糖等物质则可以通过影响mTOR信号通路影响乳蛋白的合成[9-10]
奶牛机体健康是乳蛋白高效产生的基础,处于能量负平衡或热应激状态下奶牛的泌乳性能会显著降低[11-12]。除此之外,血浆代谢物的浓度在一定程度上体现着动物机体的生理状态。例如,在热应激条件下,血液中总胆固醇(TC)、葡萄糖(GLU)、游离脂肪酸(FFA)、尿素氮(UN)等的浓度均有一定程度的升高,而总胆固醇(TC)、甘油三酯(TG)等的浓度则显著下降[13];而在能量负平衡状态下,奶牛呈现出低血糖、高血浆非酯化脂肪酸(NEFA)和β-羟基丁酸(BHBA)的生化特征[14]。这些特征是衡量奶牛机体健康状况的重要指标。
前人研究表明,乳腺中蛋白质的分泌过程受外周循环系统中激素水平及代谢微环境的动态调控[15]。为了进一步探究奶牛乳蛋白产量差异的内在调控机制,本研究拟通过整合分析乳蛋白产量高、低奶牛血浆生化指标、激素浓度和非靶向代谢组学数据,筛选与乳蛋白合成显著相关的代谢标志物群,结合代谢通路富集分析,解析营养代谢-激素调控网络对乳蛋白合成的协同作用机制,为优化奶牛乳腺功能调控策略提供理论依据。

1 材料与方法

1.1 试验动物及饲养管理
本研究在淮安市杰隆牧业有限公司的泌乳牛舍进行,试验涉及的所有操作程序均遵循中国南京农业大学动物实验伦理委员会(许可证号:SYXK 2011-0036)的相关规定。
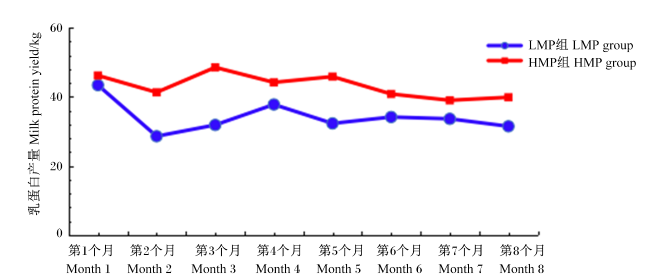
从牛场提供的奶牛生产性能测定(DHI)数据中收集所有荷斯坦奶牛(565头)的乳产量及乳成分数据(2023年1月至2023年9月,8个数据点)。在体况良好、胎次(2或3胎)、泌乳天数[(328.1±9.0) d]和产奶量[(32.75±1.93) kg]相近的奶牛中,根据乳蛋白产量(产奶量×乳蛋白率)将奶牛分成高乳蛋白产量组(HMP组,月均乳蛋白产量>41.09 kg)、低乳蛋白产量组(LMP组,月均乳蛋白产量<36.16 kg)2个试验组,每组6头奶牛。所选奶牛8个月(2023年1月至2023年8月)的月均乳蛋白产量如图1所示。
图1 HMP组和LMP组奶牛8个月的月均乳蛋白产量

Fig.1 Monthly average milk protein yield of dairy cows in HMP and LMP groups over 8 months

1.2 血液采集与血浆制备

从2组中各选3头奶牛于2023年11月7日晨饲后通过尾根静脉采集血液10 mL,置于乙二胺四乙酸(EDTA)真空抗凝管中,在4 ℃条件下用赛洛捷克SCILOGEX S1010E型离心机以666.4×g的离心力离心10 min,然后取上清液获得血浆并保存在-80 ℃冰箱,待测血浆生化指标、血浆激素浓度以及血浆代谢组。

1.3 血浆生化指标的测定

血浆中谷丙转氨酶(ALT)、谷草转氨酶(AST)、乳酸脱氢酶(LDH)活性,总蛋白(TP)、白蛋白(ALB)、总胆红素(TBIL)、总胆汁酸(TBA)、尿素氮(UN)、肌酐(CRE)、葡萄糖(GLU)、总胆固醇(TC)、甘油三酯(TG)、高密度脂蛋白(HDL)、低密度脂蛋白(LDL)浓度使用商业试剂盒(山东博科诊断科技有限公司)测定,而球蛋白(GLB)浓度通过TP浓度减去ALB浓度计算得出。

1.4 血浆激素浓度的测定

将血浆样品送至江苏酶免实业有限公司进行胰岛素(INS)、GH、PRL和IGF-1浓度的测定。

1.5 血浆代谢组的测定

将血浆样品送至广州基迪奥生物科技有限公司,运用超高效液相色谱系统(Vanquish UHPLC,Thermo Fisher公司,德国)对已处理的样品实施色谱分离;采用质谱仪(Q ExactiveTM HF-X,Thermo Fisher公司,德国)对色谱分离后得到的色谱峰进行分析;质谱扫描范围设定为质荷比(m/z)100~1 500;电喷雾离子源(ESI)的设置参数如下:喷雾电压3.2 kV,鞘气流速40 a.u.,辅助气体流速10 a.u.,毛细管温度320 ℃,离子极性分为正、负2种模式,串联质谱(MS/MS)二级扫描采用数据依赖性采集(DDA)模式。利用MSDIAL软件的XCMS程序,对格式转换后的原始数据进行峰面积提取、峰对齐操作以及保留时间校正。借助自建的代谢物标准品库(如MassBank、HMD等)和公共数据库,对代谢物的结构开展鉴定工作。
使用SIMCA-P 14.1软件,针对删除了数据组内缺失值超过50%离子峰的正、负离子模式进行识别。对经Pareto scaling预处理后的数据实施多维统计分析,具体涵盖无监督主成分分析(PCA)、有监督偏最小二乘法判别分析(PLS-DA)。

1.6 数据处理与分析

采用SPSS 22.0软件对数据进行独立样本t检验。P<0.05时,认为差异显著;P<0.01时,认为差异极显著;0.05≤P≤0.10时,认为差异有显著趋势。结果以平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 不同乳蛋白产量奶牛的血浆生化指标

表1所示,LMP组奶牛血浆ALT活性及TC、LDL和HDL浓度极显著高于HMP组(P<0.01),血浆UN浓度显著高于HMP组(P<0.05);LMP组的血浆AST活性有高于HMP组的趋势(P=0.078),而LMP组的血浆TG浓度有低于HMP组的趋势(P=0.079)。
表1 不同乳蛋白产量奶牛的血浆生化指标

Table 1 Plasma biochemical indices in dairy cows with different milk protein yields

项目
Items
组别Groups 均值标准误
SEM
P
P-value
LMP HMP
谷丙转氨酶ALT/(U/L) 29.21 21.28 1.452 0.002
谷草转氨酶AST/(U/L) 68.35 56.43 5.615 0.078
总蛋白TP/(g/L) 74.29 77.37 3.307 0.388
白蛋白ALB/(g/L) 27.53 27.21 1.055 0.777
球蛋白GLB/(g/L) 46.76 50.15 3.194 0.330
葡萄糖GLU/(mmol/L) 3.84 3.71 0.104 0.242
乳酸脱氢酶LDH/(U/L) 551.82 497.18 57.796 0.381
甘油三酯TG/(mmol/L) 0.15 0.19 0.021 0.079
肌酐CR/(μmol/L) 125.24 118.04 13.411 0.610
总胆固醇TC/(mmol/L) 5.86 3.40 0.412 0.001
低密度脂蛋白LDL/(mmol/L) 5.56 3.05 0.500 0.002
高密度脂蛋白HDL/(mmol/L) 1.20 0.81 0.089 0.005
尿素氮UN/(mmol/L) 5.44 4.02 0.452 0.020
总胆汁酸TBA/(μmol/L) 10.47 13.90 2.075 0.150
总胆红素TBIL/(μmol/L) 0.76 0.83 0.067 0.351
谷丙谷草比ALT/AST 2.34 2.66 0.218 0.198
白球比ALB/GLB 0.59 0.55 0.043 0.399

2.2 不同乳蛋白产量奶牛的血浆激素浓度

表2所示,HMP组奶牛的血浆GH浓度显著低于LMP组(P<0.05),而血浆PRL浓度则显著高于LMP组(P<0.05)。
表2 不同乳蛋白产量奶牛的血浆激素浓度

Table 2 Plasma hormone concentrations in dairy cows with different milk protein yields

项目
Items
组别Groups 均值标准误
SEM
P
P-value
LMP HMP
生长激素GH/(ng/mL) 14.03 8.76 1.430 0.010
催乳素PRL/(mIU/L) 445.30 673.54 91.431 0.047
胰岛素INS/(mIU/L) 26.94 26.72 4.774 0.964
胰岛素生长因子-1 IGF-1/(ng/mL) 199.64 208.43 38.323 0.826

2.3 血浆代谢组鉴定

2.3.1 数据预处理

对原始数据进行峰识别、峰过滤、峰对齐处理,得到包括质荷比和保留时间及峰面积等信息的数据结果,获得正、负离子模式下的前体分子,为使不同量级的数据能够进行比较,对定量结果进行归一化,再基于高分辨质谱(HRMS)检测技术对样本中的分子特征峰进行分析,最后在正离子模式下得到13 229个峰,其中有2 224个已鉴定的代谢物,11 005个未鉴定的代谢特征峰;同时,在负离子模式下得到10 028个峰,其中已鉴定的代谢物有1 341个,未鉴定的代谢特征峰有8 687个。

2.3.2 PCA和PLS-DA置换检验

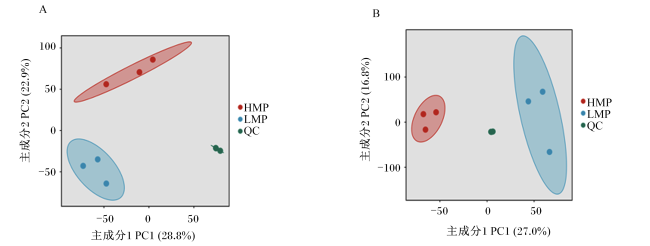
在正、负离子模式下,QC样本在PCA图中均密集分布,说明数据可靠,同时从PCA图中还可看出HMP组和LMP组样本有明显的分离趋势(图2)。
图2 样本质控主成分分析散点图

图A为正离子模式下分析结果,图B为负离子模式下分析结果。LMP:LMP组样本;HMP:HMP组样本;QC:所有待测溶液的等体积混合样本。下图同。

Fig.2 Sample quality control PCA scatter plot

Figure A shows the analysis results under positive ion mode, while figure B shows those under negative ion mode. LMP: samples of LMP group; HMP: samples of HMP group; QC: an equal-volume mixture of all tested solutions. The same as below.

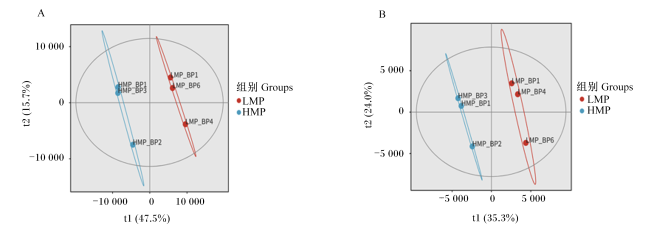
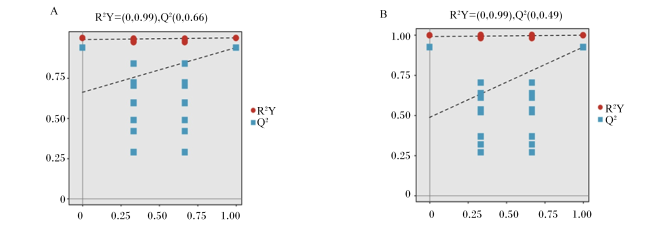
利用PLS-DA来进一步评估2组间血浆样本的差异,结果显示,正、负离子模式下HMP组和LMP组样本均被明显区分开(图3),且模型在正离子模式下R2Y=0.999、Q2=0.939,负离子模式下R2Y=0.998、Q2=0.924,均大于0.5且趋近于1,说明模型稳定性较强且有良好的预测性。对正、负离子模式下的PLS-DA模型进行置换检验,发现在正、负离子模式下,所有随机置换的Q2点都低于最右边原始模型的Q2点(图4),说明PLS-DA模型预测结果可靠,可进行下一步分析。
图3 样本PLS-DA得分图

Fig.3 Sample PLS-DA score plot

图4 样本PLS-DA置换检验图

横坐标为置换保留比例,纵坐标为R2Y 和 Q2。保留比例为 1.00时对应的点即为原始模型的 R2Y 与 Q2值。

Fig.4 Sample PLS-DA permutation test plot

The X-axis represents the permutation retention ratio, and the Y-axis represents R2Y and Q2. The point corresponding to a retention ratio of 1.00 indicates the R2Y and Q2 values of the original model.

2.3.3 不同乳蛋白产量奶牛的血浆差异代谢物

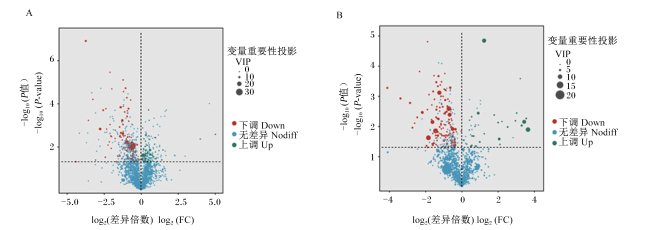
图5所示,在正、负离子模式下分别找到145、157个差异代谢物[P<0.05,变量重要性投影(VIP)>1.0]。与HMP组相比,LMP组在正离子模式下有48个上调的差异代谢物和97个下调的差异代谢物,而在负离子模式下有29个上调的差异代谢物和128个下调的差异代谢物。
图5 差异代谢物火山图

红色的点代表发生下调的差异代谢物(VIP>1且P<0.05),绿色的点代表发生上调的差异代谢物(VIP>1且P<0.05)。

Fig.5 Volcano plots of differential metabolites

Red dots represent significantly downregulated differential metabolites with VIP>1 and P<0.05, while green dots denote significantly upregulated differential metabolites with VIP>1 and P<0.05.

表3所示为正离子模式下比较组(LMP组vs HMP组)中VIP≥5且P<0.05的血浆差异代谢物,共有24个。在正离子模式下,齿阿米素(visnagin)、拉莫三嗪(lamotrigine)、伊立玛醌(ilimaquinone)、月桂酸(dodecanoic acid)、2-磷酸甘油酸(2-phosphoglycerate)等代谢物在HMP组中显著富集,溶血磷脂酰胆碱18∶2(LPC18∶2)、异乐灵(isopropalin)、甘油磷酸胆碱(glycerophosphocholine)等代谢物在LMP组中显著富集。
表3 正离子模式下血浆差异代谢物

Table 3 Plasma differential metabolites under positive ion mode

代谢物
Metabolites
组别Groups 变量重要
性投影
VIP
P
P-value
LMP HMP
磷脂酰胆碱18∶2 LPC18∶2 33 602 752.09 21 808 933.68 35.872 0.009
甘油磷酰胆碱Glycerophosphocholine 5 980 027.21 3 124 603.14 17.664 0.006
齿阿米素Visnagin 21 696 534.45 23 897 376.96 14.982 0.025
拉莫三嗪Lamotrigine 7 457 284.35 8 846 136.37 11.875 0.026
2-十六烷酰硫基-1-乙基磷酰胆碱
2-hexadecanoylthio-1-ethylphosphorylcholine
1 368 725.98 202 623.77 11.459 0.002
异乐灵Isopropalin 1 849 962.26 773 950.31 11.210 0.001
1-硬脂酰-2-油酰-sn-甘油-3-磷酸乙醇胺
1-stearoyl-2-oleoyl-sn-glycero-3-phosphoethanolamine
1 873 778.87 805 648.50 10.985 0.002
1-硬脂酰-2-油酰-sn-甘油-3-磷酸胆碱
1-octadecanoyl-2-octadecenoyl-sn-glycero-3-phosphocholine
2 062 582.85 3 143 401.72 10.598 0.014
伊立玛醌Ilimaquinone 5 876 009.66 6 855 208.90 9.932 0.026
1-(1Z-十六碳烯基)-sn-甘油-3-磷酸胆碱
1-(1Z-hexadecenyl)-sn-glycero-3-phosphocholine
1 310 960.11 506 206.92 9.703 <0.001
2-磷酸甘油酸2-phosphoglycerate 12 283 841.01 13 146 703.48 9.214 0.038
硫醚磷脂酰胆碱Thioetheramide-PC 1 800 322.28 1 123 735.52 8.578 0.010
花生四烯酰硫代磷酰胆碱Arachidonoylthiophosphorylcholine 3 512 640.88 2 770 775.46 8.499 0.046
(3R,6R)-6-[(3R,5S,7R,8R,9S,10S,12S,13R,14S,17R)-3,7-二乙酰氧基-12-羟基-10,13-二甲基十六氢-1H-环戊烷并[a]菲-17-基]庚烷-1,3-二基二乙酸酯
(3R,6R)-6-[(3R,5S,7R,8R,9S,10S,12S,13R,14S,17R)-3,7-diacetoxy-12-hydroxy-10,13-dimethylhexadecahydro-1H-cyclopenta[a]phenanthren-17-yl]heptane-1,3-diyl diacetate
644 795.34 48 678.48 8.378 <0.001
诺米林Nomilin 1 004 745.92 393 522.71 8.320 0.002
1-油酰-sn-甘油-3-磷酸胆碱
1-oleoyl-sn-glycero-3-phosphocholine
1 911 789.63 2 596 519.74 8.024 0.049
焦谷氨酰-苯丙氨酰-精氨酸Pyroglu-Phe-Arg 1 004 538.61 560 503.08 7.200 <0.001
月桂酸Dodecanoic acid 1 754 126.39 2 205 260.67 7.139 0.003
1-花生四酰基-2-羟基-sn-甘油-3-磷酸胆碱
1-arachidoyl-2-hydroxy-sn-glycero-3-phosphocholine
633 073.11 235 372.62 6.285 0.027
氯溴隆Chlorbromuron 3 738 299.60 3 364 727.53 6.123 0.040
醋酸甲地孕酮Megestrol acetate 330 474.21 56 529.03 5.628 <0.001
1-十五烷酰基-sn-甘油-3-磷酸胆碱
1-pentadecanoyl-sn-glycero-3-phosphocholine
969 311.76 666 079.38 5.393 0.043
达托利昔布Dactolisib 438 658.44 213 292.70 5.148 <0.001
丙溴磷Profenofos 1 473 122.48 1 233 625.45 5.102 0.008
表4所示为负离子模式下比较组(LMP组vs HMP组)中VIP≥5且P<0.05的差异代谢物,共20个。在负离子模式下,雌三醇(E3)、刃天青(resazurin)、1-[4-二氢-2H-色烯-4-基)苯基]十二烷-1-酮(1-[4-dihydro-2h-chromen-4-yl]phenyl]dodecan-1-one)等代谢物在HMP组中显著富集,1-硬脂酰-sn-甘油-3-磷酰胆碱(1-stearoyl-2-hydroxy-sn-glycero-3-phosphocholine)、绿僵菌素A(destruxin A)、异秦皮碱(isogentisin)等代谢物在LMP组中显著富集。
表4 负离子模式下血浆差异代谢物

Table 4 Plasma differential metabolites under negative ion mode

代谢物
Metabolites
组别Groups 变量重
要性投影
VIP
P
P-value
LMP HMP
6-硫酸氨基葡萄糖D-glucosamine,6-sulfate 542 361.80 199 584.81 10.713 0.014
香柑醇Bergaptol 479 070.08 134 008.15 10.542 0.024
1-硬脂酰-sn-甘油-3-磷酰胆碱
1-stearoyl-2-hydroxy-sn-glycero-3-phosphocholine
747 908.94 458 564.09 10.364 0.003
雌三醇E3 25 849.40 327 408.42 10.116 0.013
绿僵菌素A Destruxin A 424 887.79 180 535.54 9.602 0.001
刃天青Resazurin 170 697.08 402 599.48 9.362 <0.001
1-[2,4,6-三羟基-3-(7-羟基-2-(4-羟基苯基)-3,4-二氢-2H-色烯-4-基)苯基]十二烷-1-酮
1-[2,4,6-trihydroxy-3-[7-hydroxy-2-(4-hydroxyphenyl)-3,4-dihydro-2H-chromen-4-yl]phenyl]dodecan-1-one
23 178.82 253 728.23 8.990 0.007
异秦皮碱Isogentisin 597 549.17 376 622.61 8.830 0.004
(2-氨基乙氧基)[2-[(9Z)-十六碳-9-烯酰氧基]-3-[十八碳-1,11-二烯-1-基氧基]丙氧基]次膦酸
(2-aminoethoxy)[2-[hexadec-9-enoyloxy]-3-
[octadeca-1,11-dien-1-yloxy]propoxy]phosphinic acid
305 068.48 99 588.21 8.659 0.007
2-[(10E,12Z)-9-羟基十八碳-10,12-二烯酰]氧基-3-[(Z)-十八碳-1-烯氧基]丙基2-(三甲基铵)乙基磷酸酯
Pc(18∶1e/9-HODE)
656 441.44 463 913.85 8.252 0.012
L-氢化乳清酸L-dihydroorotate 686 827.33 526 567.14 6.937 0.042
白三烯B4 Leukotriene B4 151 340.45 33 511.35 6.533 0.003
2-花生四烯酰-1-硬脂酰-sn-甘油
2-arachidonoyl-1-stearoyl-sn-glycerol
127 504.84 239 985.53 6.338 0.004
光甘草内酯Glabrolide 36 373.98 152 800.24 6.145 0.026
1-(9Z,12Z-十八碳二烯酰)-2-羟基-sn-甘油-3-磷酸乙醇胺
1-(9Z,12Z-octadecadienoyl)-2-hydroxy-sn-glycero-3-
phosphoethanolamine
153 032.34 62 695.52 5.749 0.006
3-[(Z)-十六碳-1-烯氧基]-2-[(10E,12Z)-9-羟基十八碳-10,12-二烯酰]氧基丙基2-(三甲基铵)乙基磷酸酯
Pc(16∶1e/9-HODE)
422 008.18 332 753.33 5.531 0.013
苯乙酰甘氨酸Phenaceturic acid 153 179.37 61 451.21 5.494 0.020
亚牛磺酸Hypotaurine 218 269.27 124 739.59 5.331 0.038
1-硬脂酰基-2-羟基-sn-甘油-3-磷酸乙醇胺
1-stearoyl-2-hydroxy-sn-glycero-3-phosphoethanolamine
211 761.64 136 617.20 5.302 0.001
3-[(4-氯苯甲酰基)氨基]丙酸
3-[(4-chlorobenzoyl)amino]propanoic acid
162 225.80 81 735.53 5.150 0.030

2.3.4 不同乳蛋白产量奶牛的血浆差异代谢通路

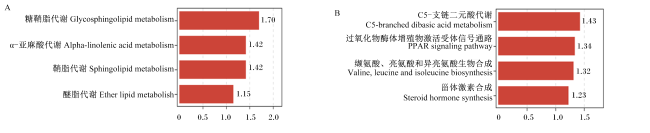
基于KEGG数据库,对差异代谢物进行通路富集分析,以确定在组间比较中显著富集的代谢与信号转导通路,如图6所示。在正离子模式下,糖鞘脂代谢(glycosphingolipid metabolism)、α-亚麻酸代谢(alpha-linolenic acid metabolism)、鞘脂代谢(sphingolipid metabolism)3条代谢通路显著富集;在负离子模式下,C5-支链二元酸代谢(C5-branched dibasic acid metabolism)、过氧化物酶体增殖物激活受体信号通路(PPAR signaling pathway)及缬氨酸、亮氨酸和异亮氨酸生物合成(valine, leucine and isoleucine biosynthesis)3条代谢通路显著富集。
图6 KEGG通路富集分析柱状图

横坐标为通路经过超几何检验后得到的P值取-log10后的数值(-log100.05≈1.301 03,-log100.01=2),纵坐标为通路名称。

Fig.6 KEGG pathway enrichment analysis bar chart

The X-axis represents the -log10(P-value) obtained from hypergeometric tests on pathways (-log100.05≈1.301 03,-log100.01=2), while the Y-axis displays pathway names.

3 讨论

3.1 脂代谢对奶牛乳蛋白合成的影响

胆固醇是细胞膜的组成成分,也是机体合成类固醇激素、胆汁酸和维生素D等物质的前体[16]。胆固醇的运输需要与脂蛋白结合,其中LDL与HDL是2种主要的形式。在本试验中,HMP组血浆中TC、HDL与LDL的浓度均极显著低于LMP组,其原因可能与泌乳奶牛能量平衡以及胆固醇代谢有关。相关研究表明,在能量负平衡更加明显严重的奶牛,其血浆中胆固醇和LDL的浓度更低[17]。也有研究表明血浆高胆固醇浓度有助于减轻能量负平衡状态[18]。本试验中的奶牛在采样时均处于产奶后期,因此不考虑其处于能量负平衡状态。我们推测,2组奶牛血浆中TC、HDL与LDL浓度的差异是其能量分配策略差异的结果,HMP组奶牛将大部分能量用于产乳和乳蛋白的合成,进而进入类似“能量负平衡”的状态,而LMP组奶牛较高的血浆TC浓度减轻了这种能量分配倾向,进而导致了乳蛋白产量的下降。
此外,甘油磷脂代谢是细胞膜磷脂合成与分解的核心途径,主要包括磷脂酰胆碱(PC)、磷脂酰乙醇胺(PE)及其衍生物的代谢。溶血磷脂酰胆碱(LPC)是磷脂酰胆碱的降解产物,LPC和PC之间的脂质转化已被证实与甘油磷酸代谢有关[19]。在本试验中,被显著富集的相关KEGG通路有糖鞘脂代谢、α-亚麻酸代谢、鞘脂代谢。前人研究表明,磷胆碱胞苷基转移酶(CCT)催化CDP-磷胆碱途径中合成PC和PC衍生脂质的限速和调控步骤[20],而细胞内PC浓度的相对下降可能触发CCT向膜的转运并增强PC合成。CDP-磷胆碱作为PC的前体物质理应同步增多,但本试验结果与之相矛盾,这可能是LMP组奶牛体细胞内膜脂稳态信号失效,CCT异常滞留于膜上(即使PC已充足),过度消耗CDP-磷胆碱,而这一环节的失调可能导致奶牛脂代谢受阻,从而造成肝部损伤,进而影响奶牛乳蛋白的合成。

3.2 磷脂酰肌醇3激酶(PI3K)/蛋白激酶B(Akt)/mTOR信号通路对奶牛乳蛋白合成的影响

月桂酸属于中链脂肪酸,常存在于椰子油、棕榈仁油、牛乳等中,在抗菌、代谢调控等方面有着广泛的应用潜力。PI3K/Akt信号通路是细胞内重要的信号转导通路,其作为mTOR的上游信号通路,通过激活mTOR信号通路参与乳成分的合成[21],在乳成分合成与分泌过程中发挥核心调控作用[22]。Yang等[23]在之前的研究中证实,月桂酸可通过激活细胞内PI3K/Akt信号通路以促进小鼠乳腺发育和增加乳汁分泌。本试验结果显示,HMP组奶牛血浆中月桂酸浓度极显著高于LMP组。体外试验表明,一定浓度的月桂酸可促进奶牛乳腺上皮细胞增殖[24],而奶牛乳蛋白主要由乳腺细胞利用来自血液的氨基酸作为底物合成,从而提高奶牛乳蛋白产量,据此推测,月桂酸通过直接促进乳腺上皮细胞的增殖、激活细胞内PI3K/Akt信号通路,甚至激活其下游的mTOR信号通路以间接促进奶牛乳腺上皮细胞的增殖、分化和乳蛋白的合成。

3.3 糖代谢对奶牛乳蛋白合成的影响

糖酵解产生许多可用于生物合成的中间产物以支持其他代谢和生物合成过程,如烟酰胺腺嘌呤二核苷酸(NADH),此外,糖酵解也是一种快速产生能量的方法[25]。2-磷酸甘油酸是糖酵解和糖异生途径中的关键中间代谢物,由3-磷酸甘油酸经磷酸甘油酸变位酶催化生成,随后转化为磷酸烯醇式丙酮酸(PEP),最终生成ATP。在糖异生途径中,2-磷酸甘油酸逆向反应参与葡萄糖的合成,2-磷酸甘油酸的浓度在一定程度上反映了生物体糖酵解与糖异生的综合水平。在本试验中,HMP组奶牛血浆中2-磷酸甘油酸的浓度极显著高于LMP组,可能是HMP组奶牛机体的糖酵解与糖异生活动更强,糖酵解通过分解葡萄糖快速供能并为乳蛋白合成提供前体物质,而糖异生则持续补充血糖,确保乳腺葡萄糖供应稳定,进而直接影响奶牛乳腺细胞的ATP供应和乳蛋白合成效率。

3.4 肝脏健康对奶牛乳蛋白合成的影响

文献指出,肝脏对奶牛乳蛋白合成至关重要,其通过合成小肽及调控UN循环等环节为乳腺提供关键前体物质,肝脏的损伤会破坏这些代谢过程,进而导致乳蛋白合成受阻[26]。Tate等[27]在一项研究中对犊牛注射LPC,发现皮下注射LPC造成犊牛肝细胞损伤,血清ALB和TP浓度显著下降,而ALT活性上升。ALT在正常情况下大多数存在于细胞内,尤其是在心肌细胞与肝脏细胞中。然而,当这些组织细胞受到损伤时,ALT会逸出至血液中。研究发现,血液中ALT活性升高代表着肝脏与心肌细胞的损伤[28]。在本试验中,HMP组奶牛血浆中LPC18∶2浓度和ALT活性极显著低于LMP组。之前的研究发现,血液中ALT的活性与平均日产奶量呈现显著的负相关[29],这与本试验结果相吻合,可能是LPC影响了奶牛肝脏功能,从而导致奶牛蛋白质合成受到抑制,进而影响奶牛乳蛋白的合成。在本试验中,HMP组奶牛血浆UN含量显著低于LMP组。研究表明,在饲喂低蛋白质饲粮条件下,血液中UN的浓度处于较低的水平,奶牛有着较高的氮利用效率,同时产奶量也高于饲喂高蛋白质饲粮饲喂的奶牛[30]。后续也有研究发现血液中UN浓度与乳脂率、乳蛋白率和乳糖率有着显著的负相关关系[31]。我们推测,血液中较低的ALT活性反映出HMP组奶牛的肝脏处在健康状态,较低的UN浓度则反映出其肝脏功能尤其是氮代谢方面较LMP组有明显优势,进而导致乳蛋白产量的差异。

3.5 炎症对奶牛乳蛋白合成的影响

本研究发现,LMP组奶牛血浆中白三烯B4(LTB4)浓度极显著高于HMP组。LTB4是重要的炎症介质[32],其浓度升高表明LMP组奶牛可能处于低度炎症状态。这种慢性炎症可能会消耗大量能量和氨基酸资源,从而竞争性地抑制乳蛋白合成。此外,本研究中HMP组奶牛血浆中光甘草内酯(glabrolide)浓度显著高于LMP组。光甘草内酯是一种从甘草中提取的具有多种药理特性的类黄酮化合物,前人研究表明,该化合物能够抑制核因子-κB(NF-κB)通路的活化和炎症因子[如肿瘤坏死因子-α(TNF-α)和白细胞介素-6(IL-6)]的分泌[33],下调环氧化酶和脂氧合酶的表达[34];并且,光甘草内酯能够通过防止成骨细胞的细胞周期停滞、减少活性氧(ROS)的产生和积累、提高抗氧化酶活性以及抑制细胞凋亡,从而预防骨质流失[35]。由此推断,LMP组奶牛因低度慢性炎症持续消耗机体有限的营养物质,导致用于乳蛋白合成的底物和ATP被炎症微环境占用,而HMP组奶牛因具备更良好的抗炎症能力,有效减轻了乳腺氧化应激与炎症损伤,维持乳腺细胞代谢稳态,间接促进乳蛋白合成,从而达到高产的效果。

3.6 激素代谢对奶牛乳蛋白产量的影响

常见的内源性雌激素有雌酮(E1)、17β-雌二醇(E2)和E3,而E3是一种天然雌性类固醇激素,其中E2作用最有效且研究最广泛,E1和E3与雌激素受体结合亲和力较低,对其在泌乳方面影响的研究较少。雌激素在哺乳期会抑制机体产奶,已有研究表明,血浆E2浓度与产后4周的泌乳量呈负相关,给牛注射E2会减少干奶期产奶量并加速乳腺退化;并且,高浓度E2长期存在会破坏乳腺紧密连接,使乳糖转移,还会增强牛乳腺上皮细胞的凋亡过程,这些都对产奶量有负面影响。断奶后,E2在小鼠模型中被证实可通过增加炎症、细胞死亡和脂肪细胞增殖来促进乳腺退化[36]。本试验中检测到HMP组奶牛血浆中E3浓度显著高于LMP组,根据以上结果推测高产奶牛泌乳过程中可能通过增强E3合成拮抗E2的泌乳抑制效应,并协同PRL等激素优化乳腺功能,这提示E3可能在泌乳调控中具有潜在独立作用。
PRL是由垂体前叶及外周组织分泌的23-kDa多肽激素,通过结合催乳素受体(PRLR),可促进乳腺腺泡发育,以提高乳的合成和分泌[37]。前人研究表明,PRL能够提高乳腺酪蛋白mRNA表达量,直接参与奶牛乳蛋白合成调控[38]。本试验结果显示,HMP组奶牛血浆中PRL浓度显著高于LMP组,与前人的结论相符。
INS是动物体内唯一具有降血糖功能的激素,在调节糖代谢、脂代谢、蛋白质合成中起到重要作用。前人研究表明,血液中INS浓度与奶牛乳蛋白产量呈正相关[39]。但在本试验中,奶牛血浆中INS浓度在HMP组和LMP组间并无显著差异。我们推测,HMP组奶牛可能对于INS具有更高的敏感性,因此虽然2组奶牛血浆中INS浓度相近,但其在HMP组奶牛体内会发挥更大的生理学效益。
GH是由脑垂体前叶合成和分泌的一类单链多肽类激素[40],对乳腺发育和泌乳有明显的促进作用。IGF-1是一种在哺乳动物体内广泛存在的多肽类激素,主要由肝脏合成,它在体内的合成和分泌受到GH的调控。GH/IGF-1作为促生长轴已被证实存在,其不仅作用于乳腺调节泌乳和乳成分,还影响肝脏等外周器官发挥能量迁移作用。本试验结果显示,HMP组奶牛血浆中GH浓度极显著高于LMP组,而血浆中IGF-1浓度2组间无显著差异。我们推测,高产奶牛乳腺组织可能对GH更敏感,生长激素受体(GHR)表达量增加,使GH直接作用于乳腺促进乳蛋白合成,而不依赖IGF-1介导的间接作用。

4 结论

在不同乳蛋白产量奶牛血浆中共鉴定出302个差异代谢物,其中正离子模式下145个,负离子模式下157个。低乳蛋白产量奶牛血浆中磷脂衍生物显著富集,主要激活糖鞘脂代谢、α-亚麻酸代谢及鞘脂代谢通路;而高乳蛋白产量奶牛则呈现出更优的氮代谢效率及促泌乳激素环境。低乳蛋白产量奶牛因甘油磷脂代谢紊乱和潜在的炎症状态增加了肝脏代谢负荷;而高乳蛋白产量奶牛则通过月桂酸介导的脂代谢优化、高效的氮利用以及特定的激素调控网络(血浆中高PRL、E3浓度,低GH浓度),协同驱动了更高的乳蛋白合成效率,这可能是高、低乳蛋白产量奶牛乳蛋白合成差异的重要代谢机制。
[1]
BACKWELL F R, BEQUETTE B J, WILSON D, et al. Evidence for the utilization of peptides for milk protein synthesis in the lactating dairy goat in vivo[J]. The American Journal of Physiology, 1996, 271(4 Pt 2):R955-R960.

DOI

[2]
DAVIS S R, MEPHAM T B. Metabolism of L-(U-14C)valine,L-(U-14C)leucine,L-(U-14C)histidine and L-(U-14C) phenylalanine by the isolated perfused lactating guinea-pig mammary gland[J]. Biochemical Journal, 1976, 156(3):553-560.

DOI

[3]
朱雯. 粗料来源对奶牛乳蛋白前体物生成与生产性能的影响与机制研究[D]. 博士学位论文. 杭州: 浙江大学, 2013.

ZHU W. Effects of forage sources on milk protein precursors and lactation performance in dairy cows and approach to the mechanism[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2013. (in Chinese)

[4]
MERCIER J C, GAYE P. Early events in secretion of main milk proteins:occurrence of precursors[J]. Journal of Dairy Science, 1982, 65(2):299-316.

DOI

[5]
BAUMGARD L H, WHEELOCK J B, SANDERS S R, et al. Postabsorptive carbohydrate adaptations to heat stress and monensin supplementation in lactating Holstein cows[J]. Journal of Dairy Science, 2011, 94(11):5620-5633.

DOI PMID

[6]
WATSON C J, BURDON T G. Prolactin signal transduction mechanisms in the mammary gland:the role of the JAK/STAT pathway[J]. Reviews of Reproduction, 1996, 1(1):1-5.

DOI

[7]
MOLENTO C F M, BLOCK E, CUE R I, et al. Effects of insulin,recombinant bovine somatotropin,and their interaction on insulin-like growth factor-Ⅰ secretion and milk protein production in dairy cows[J]. Journal of Dairy Science, 2002, 85(4):738-747.

DOI

[8]
YANG J, KENNELLY J J, BARACOS V E. The activity of transcription factor STAT5 responds to prolactin,growth hormone,and IGF-Ⅰ in rat and bovine mammary explant culture[J]. Journal of Animal Science, 2000, 78(12):3114-3125.

DOI

[9]
APPUHAMY J A D R N, NAYANANJALIE W A, ENGLAND E M, et al. Effects of AMP-activated protein kinase (AMPK) signaling and essential amino acids on mammalian target of rapamycin (mTOR) signaling and protein synthesis rates in mammary cells[J]. Journal of Dairy Science, 2014, 97(1):419-429.

DOI PMID

[10]
BURGOS S A, DAI M, CANT J P. Nutrient availability and lactogenic hormones regulate mammary protein synthesis through the mammalian target of rapamycin signaling pathway[J]. Journal of Dairy Science, 2010, 93(1):153-161.

DOI PMID

[11]
但雨涛, 王云琴, 龙玲, 等. 奶牛泌乳早期能量负平衡的危害及调控措施[J]. 饲料研究, 2025, 48(12):171-175.

DAN Y T, WANG Y Q, LONG L, et al. Harm and control measures of negative energy balance in early lactation of dairy cows[J]. Feed Research, 2025, 48(12):171-175. (in Chinese)

[12]
吕美, 刘红云. 热应激对奶牛乳蛋白合成的影响机制[J]. 中国畜牧杂志, 2023, 59(4):63-68.

LV M, LIU H Y. Mechanism of heat stress affecting milk protein synthesis in dairy cows[J]. Chinese Journal of Animal Science, 2023, 59(4):63-68. (in Chinese)

[13]
米晓晓. 基于16S rRNA和代谢组学解析高温环境下育成牛耐热性的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2024.

MI X X. Based on 16S rRNA and metabolomics,the differential mechanism of heat tolerance of bred cattle under high temperature under heat stress conditions was analyzed[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2024. (in Chinese)

[14]
夏成, 王洪斌, 张洪友, 等. 能量负平衡对泌乳早期奶牛生产性能、繁殖性能和机体代谢的影响[J]. 中国畜牧杂志, 2009, 45(21):32-35.

XIA C, WANG H B, ZHANG H Y, et al. Effects of negative energy balance on productive performance,reproductive performance,and metabolism in early lactation dairy cows[J]. Chinese Journal of Animal Science, 2009, 45(21):32-35. (in Chinese)

[15]
王新玲. 基于多组学技术研究奶牛乳蛋白合成的调控机制[D]. 博士学位论文. 南京: 南京农业大学, 2023.

WANG X L. Multi-omics investigates the regulatory factors of milk protein synthesis in dairy cows[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2023. (in Chinese)

[16]
张岳. 胆甾醇酯衍生物的制备及其生物活性研究[D]. 硕士学位论文. 长春: 吉林农业大学, 2016.

ZHANG Y. Study of cholesterol ester derivatives and biological activity[D]. Master’s Thesis. Changchun: Jilin Agricultural University, 2016. (in Chinese)

[17]
PETROVIĆ M Ž, CINCOVIĆ M, STARIČ J, et al. The correlation between extracellular heat shock protein 70 and lipid metabolism in a ruminant model[J]. Metabolites, 2021, 12(1):19.

DOI

[18]
赵阳. 胆固醇对能量负平衡奶牛肝脂代谢的影响[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2018.

ZHAO Y. Effects of cholesterol on hepatic lipid metabolism in dairy cows with negative energy balance[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2018. (in Chinese)

[19]
高昌鹏. 基于多组学解析裂殖壶藻和栗木单宁对滩羊肉品质及脂质代谢的调控研究[D]. 博士学位论文. 银川: 宁夏大学, 2024.

GAO C P. Regulation of Schizochytrium sp. and chestnut tannin on the meat quality and lipid metabolism in Tan sheep based on multi-omics analysis[D].Ph.D.Thesis. Yinchuan: Ningxia University, 2024. (in Chinese)

[20]
CORNELL R B, RIDGWAY N D. CTP:phosphocholine cytidylyltransferase:function,regulation,and structure of an amphitropic enzyme required for membrane biogenesis[J]. Progress in Lipid Research, 2015,59:147-171.

[21]
孙冠聪, 焦丹, 谢忠奎, 等. PI3K/AKT通路在动物葡萄糖代谢中的研究进展[J]. 生命科学, 2021, 33(5):653-666.

SUN G C, JIAO D, XIE Z K, et al. Research progress of PI3K/AKT pathway in animal glucose metabolism[J]. Chinese Bulletin of Life Sciences, 2021, 33(5):653-666. (in Chinese)

[22]
段红娟, 孟桂智, 刘宝宝, 等. mTOR信号通路调控乳成分合成的研究进展[J]. 黑龙江畜牧兽医, 2023(13):23-28,35.

DUAN H J, MENG G Z, LIU B B, et al. Research progress in regulation of milk component synthesis by mTOR signaling pathway[J]. Heilongjiang Animal Science and Veterinary Medicine, 2023(13):23-28,35. (in Chinese)

[23]
YANG L, YANG Q, LI F, et al. Effects of dietary supplementation of lauric acid on lactation function,mammary gland development,and serum lipid metabolites in lactating mice[J]. Animals, 2020, 10(3):529.

DOI

[24]
沈子亮. 中国荷斯坦奶牛瘤胃微生物菌群及关键差异代谢物月桂酸对乳脂代谢的影响[D]. 硕士学位论文. 扬州: 扬州大学, 2023.

SHEN Z L. Effects of rumen microflora and key differential metabolite lauric acid on milk fat metabolism in Chinese Holstein dairy cows[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2023. (in Chinese)

[25]
温佳楠. 围产期奶牛高FFA血症通过ORAI1调控糖酵解途径影响CD4+ T淋巴细胞迁移机制的研究[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2024.

WEN J N. Study on the migration mechanism of CD4+ tlymphocytes affected by periparturient dairy cows with hyperlipemia through ORAI1-regulated glycolytic pathway[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2024. (in Chinese)

[26]
HRISTOV A N, BANNINK A, CROMPTON L A, et al. Invited review:nitrogen in ruminant nutrition:a review of measurement techniques[J]. Journal of Dairy Science, 2019, 102(7):5811-5852.

DOI

[27]
TATE B N, DEYS M M, GUTIERREZ-OVIEDO F A, et al. Subcutaneous lysophosphatidylcholine administration promotes a febrile and immune response in Holstein heifer calves[J]. Journal of Dairy Science, 2024, 107(6):3973-3987.

DOI

[28]
PUPPEL K, KUCZYŃSKA B. Metabolic profiles of cow’s blood:a review[J]. Journal of the Science of Food and Agriculture, 2016, 96(13):4321-4328.

DOI

[29]
SAKOWSKI T, KUCZYŃSKA B, PUPPEL K, et al. Relationships between physiological indicators in blood,and their yield,as well as chemical composition of milk obtained from organic dairy cows[J]. Journal of the Science of Food and Agriculture, 2012, 92(14):2905-2912.

DOI

[30]
NAVEED-UL-HAQUE M, AKHTAR M U, MUNNAWAR R, et al. Effects of increasing dietary protein supplies on milk yield,milk composition,and nitrogen use efficiency in lactating buffalo[J]. Tropical Animal Health and Production, 2018, 50(5):1125-1130.

DOI

[31]
胡羽飏, 马龙刚, 付琪, 等. 奶牛牛奶和血液尿素氮含量群体规律及回归关系的研究[J]. 中国畜牧杂志, 2023, 59(6):108-113,119.

HU Y Y, MA L G, FU Q, et al. Research on population patterns and regression relationships of milk urea nitrogen and blood urea nitrogen in dairy cows[J]. Chinese Journal of Animal Science, 2023, 59(6):108-113,119. (in Chinese)

[32]
WANG G Q, ZHENG H Y, HOU J L, et al. The role of leukotriene B4 in cow metritis[J]. Journal of Veterinary Research, 2023, 67(1):99-104.

DOI

[33]
GRENIER D, MARCOUX E, AZELMAT J, et al. Biocompatible combinations of nisin and licorice polyphenols exert synergistic bactericidal effects against Enterococcus faecalis and inhibit NF-κB activation in monocytes[J]. AMB Express, 2020, 10(1):120.

DOI

[34]
CHANDRASEKARAN C V, DEEPAK H B, THIYAGARAJAN P, et al. Dual inhibitory effect of Glycyrrhiza glabra (GutGardTM) on COX and LOX products[J]. Phytomedicine, 2011, 18(4):278-284.

DOI

[35]
TIPBUNJONG C, KHIMMAKTONG W, HENGPRATOM T, et al. Glabridin alleviates oxidative stress-induced osteoporosis by targeting the Akt/NF-κB and Akt/GSK-3β pathways[J]. International Journal of Molecular Sciences, 2025, 26(7):2949.

DOI

[36]
JIN X H, PERRELLA S L, LAI C T, et al. Causes of low milk supply:the roles of estrogens,progesterone,and related external factors[J]. Advances in Nutrition, 2024, 15(1):100129.

DOI

[37]
CHASSELOUP F, BERNARD V, CHANSON P. Prolactin:structure,receptors,and functions[J]. Reviews in Endocrine and Metabolic Disorders, 2024, 25(6):953-966.

DOI

[38]
李艳, 徐欣然, 徐春奎, 等. 催乳激素和赖氨酸对奶牛乳腺上皮细胞分泌乳蛋白的影响[J]. 上海畜牧兽医通讯, 2018(5):2-7.

LI Y, XU X R, XU C K, et al. The effects of prolactin and lysine on milk protein secretion in bovine mammary epithelial cells[J]. Shanghai Journal of Animal Husbandry and Veterinary Medicine, 2018(5):2-7. (in Chinese)

[39]
GIINARI J M, MCGARE M A, DWGER D A, et al. The role of insullin in the regulation of milk protein synthesis in dairy cows[J]. Journal of Dairy Science, 1997,80:2361-237.

[40]
母晓佳, 李大彪. 激素及细胞因子调控奶牛乳腺上皮细胞增殖和泌乳的研究进展[J]. 中国细胞生物学学报, 2021, 43(5):1061-1067.

MU X J, LI D B. Research progress of hormone and cytokine regulating proliferation and lactation of bovine mammary epithelial cells[J]. Chinese Journal of Cell Biology, 2021, 43(5):1061-1067. (in Chinese)

Outlines

/