RESEARCH PAPER

Exploring the Mechanisms of Astragalus membranaceus in Alleviating Heat Stress and Weaning Stress in Calves through Network Pharmacology and Molecular Docking Technology

  • HE Tianle , 1, 2 ,
  • HUANG Zhixin 1, 3 ,
  • WANG Jingjun 1 ,
  • MA Jiaying 1 ,
  • WU Junda 1, 2 ,
  • YOU Jingtao 1 ,
  • MA Boyan 1 ,
  • MA Yulin 2 ,
  • XU Xiaofeng 2 ,
  • LI Shengli 1, 2 ,
  • CAO Zhijun 1, 2 ,
  • LIU Shuai , 1, *
Expand
  • 1 State Key Laboratory of Animal Nutrition and Feeding, International Calf and Heifer Organization, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
  • 2 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 3 College of Animal Sciences, Xinjiang Agricultural University, Urumqi 830052, China
* associate professor, E-mail:

Received date: 2025-06-26

  Online published: 2026-02-12

Abstract

This study aimed to systematically elucidate the molecular mechanisms underlying the alleviating effects of Astragalus membranaceus on heat stress and weaning stress in calves by integrating network pharmacology and molecular docking approaches. Active components of Astragalus membranaceus were retrieved from the Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP) and PubChem. Potential targets associated with calf heat stress and weaning stress were identified using GeneCards, TTD, and OMIM databases. Protein-protein interaction (PPI) networks were constructed via STRING, and the top 30 hub targets were subjected to Gene Ontology (GO) and Kyoto Encyclopedia of Genes and Genomes (KEGG) enrichment analyses using David, KOBAS, and ClueGO. Core gene clusters within the PPI network were identified using molecular complex detection (MCODE) for functional enrichment analysis. Subsequently, a “Astragalus membranaceus-active compound-target-pathway” network related to heat and weaning stress was constructed by integrating KEGG pathway enrichment results of core targets. Finally, molecular docking was performed to validate the binding affinity between 20 key active components of Astragalus membranaceus and critical target proteins. The results showed that a total of 20 active components of Astragalus membranaceus were identified, interacting with 764 potential targets, among which 81 were common targets associated with both Astragalus membranaceus and the two stress conditions. The PPI network consisted of 74 nodes and 347 edges, with 10 core targets screened. Enrichment analyses revealed significant involvement of pathways such as hypoxia inducible factor 1 (HIF-1), forkhead box O (FoxO), phosphatidylinositol 3-kinase-protein kinase B (PI3K-Akt), AMP-activated protein kinase (AMPK), endocrine resistance, and metabolic pathways, indicating that Astragalus membranaceus exerted its stress-alleviating effects primarily through these signaling pathways. The molecular docking verification results of 20 active components of Astragalus membranaceus and the corresponding proteins of 10 core target genes showed that 18 compound-target pairs exhibited binding free energies less than -7 kJ/mol, suggesting strong intermolecular interactions that may underpin the therapeutic efficacy. This study identifies key active compounds and target proteins of Astragalus membranaceus involved in modulating heat stress and weaning stress in calves, thereby clarifying its underlying mechanisms of action. The findings provide a theoretical basis for the application of Astragalus membranaceus as a feed additive to mitigate stress in calves under summer grazing conditions and offer guidance for future research and development in this field.

Cite this article

HE Tianle , HUANG Zhixin , WANG Jingjun , MA Jiaying , WU Junda , YOU Jingtao , MA Boyan , MA Yulin , XU Xiaofeng , LI Shengli , CAO Zhijun , LIU Shuai . Exploring the Mechanisms of Astragalus membranaceus in Alleviating Heat Stress and Weaning Stress in Calves through Network Pharmacology and Molecular Docking Technology[J]. Chinese Journal of Animal Nutrition, 2026 , 38(2) : 1393 -1409 . DOI: 10.12418/CJAN2026.111

近年来,犊牛的健康生长与其作为后备牛对畜牧业发展的重要性被人们广泛关注[1]。然而,在日常的饲养管理中,犊牛经常受到各种应激因素的干扰,这些应激因素通过调控犊牛食欲、情绪、生物节律及免疫力等直接影响犊牛的生长发育和健康状态,其中犊牛的热应激和断奶应激是较为严重且常见的问题[2]。热应激是在高温环境下动物机体产生的生理和生化反应的综合效应[3-4]。作为畜牧业中最重要的问题之一,热应激能直接损害包括动物生长和繁殖在内的多项生产参数[5]。犊牛和其他动物类似,在受到热应激时需要通过生理和代谢变化来应对热损伤,以维持体温正常[5]。断奶应激是指犊牛从以母乳或代乳粉为主的饲养模式转变为以饲草料为主的饲养模式过程中受到的干扰因素的总和[6]。断奶应激往往会导致犊牛采食量降低、肠道形态及功能受损、微生物群落结构变化、免疫力下降以及未知的多重并发症[6]。随着全球温度的逐年升高,夏季牧场中犊牛热应激与断奶应激的同步发生早已极大程度地影响了犊牛的生长发育和健康状态[2]。先前的研究已多次报道上述双重应激对犊牛生长和发育造成严重危害,且部分学者提出利用化学药品改善犊牛的健康状态和采食量等[7-9]。然而,目前国内的养殖条件下这些方法不仅难以大范围的推广,还会不断提升动物耐药性。因此,有必要从热应激和断奶应激影响犊牛生长发育和健康状态的综合机制出发,并寻找安全、天然、高效且可大范围推广应用的缓解方案,为进一步优化犊牛生长发育和提高养殖效益提供科学依据。
黄芪(Astragalus membranaceus)作为传统的上品中药材之一,最早被记录在《神农本草经》中[10-11]。诸多研究表明,黄芪具有多种抗炎、抗氧化和抗应激的生物活性成分[12-14]。目前,黄芪已被广泛应用于人类新药研发和畜牧业生产中,特别是用于缓解动物的各种应激反应[15-19]。黄芪中的多糖组分能通过葡萄糖和氨基酸代谢途径调节热应激奶牛的代谢,进而减少泌乳期的体能损失和提高机体抗氧化性能[16]。同时,黄芪根能通过上调D-脯氨酸、L-焦谷氨酸和鸟氨酸水平,下调4-吡哆醇酸水平来增强犊牛断奶前的抗氧化能力,并通过下调L-犬尿氨酸和亚油酸水平来提高犊牛的抗炎能力,从而提高犊牛应对环境和营养模式变化的能力,且3-羟基丁酸的上调表明黄芪根有助于促进犊牛的瘤胃发育[20]。此外,黄芪甲苷Ⅳ能通过磷脂酰肌醇3-激酶(PI3K)/蛋白激酶B(Akt)和细胞外信号调节激酶(ERK)/丝裂原活化蛋白激酶(MAPK)/核因子E2相关因子2(Nrf2)信号通路缓解氨诱导的奶牛乳腺上皮细胞氧化损伤[21]。值得注意的是,黄芪的多成分协同效应和低毒特性使其成为应对复杂应激的理想选择,尤其在现代养殖业追求“绿色、高效、无抗”的背景下,其综合优势远超类似于槲皮素和山奈酚等单一黄酮类化合物[16]。由此可见,黄芪及其主要活性成分在提升奶牛健康状态方面有重要应用价值。然而,黄芪缓解犊牛热应激和断奶应激的具体活性成分、作用途径、作用机制和应用潜力目前尚不明确。
基于此,本研究旨在借助网络药理学思路挖掘黄芪缓解犊牛热应激和断奶应激的活性成分和作用靶点,进而分析核心靶点的生物学功能和作用途径;同时,利用分子对接技术[22]验证黄芪作用成分与核心靶点对应蛋白的结合作用。深入分析黄芪缓解犊牛热应激和断奶应激的作用机制将有助于拓展犊牛应激研究的新思路和新方法,为畜牧生产的可持续发展提供理论支持和实践指导。

1 材料与方法

1.1 黄芪活性成分的筛选

黄芪主要活性成分通过西北农林科技大学王永华教授开发的中药系统药理学数据库与分析平台(TCMSP, https://www.tcmsp-e.com/tcmsp.php)获取,进入网站选择“Herb name”项并输入“HuangQi”进行检索,再通过“Latin name”进入黄芪活性成分界面,然后根据药物相似性(drug-likeness,DL)≥0.18和口服生物利用度(oral bioavailability,OB)≥0.30进行筛选。信息收集截止日期为2025年1月初,已包含该数据库最新更新的成分数据。

1.2 黄芪活性成分的作用靶点

将从TCMSP中筛选的活性成分导出为“.mol 2”格式文件,然后,将其导入到PubChem数据库(https://lilab-ecust.cn/pharmmapper/submitfile.html)进行蛋白质名称转换,转换的结果经过STRING数据库(https://cn.string-db.org)转化为规范的基因名称,其中Organisms被设定为“Bos taurus”。接着,将转化后的潜在靶点合并、去重,并与黄芪主要活性成分导入Cytoscape 3.10.0软件中构建黄芪主要活性成分与潜在调控靶点的作用网络。

1.3 黄芪缓解犊牛热应激和断奶应激的作用靶点

热应激和断奶应激的作用靶点通过公共数据库获取。具体操作为:分别用“heat stress”和“weaning stress”在GeneCards数据库(https://www.genecards.org)、TTD数据库(https://db.idrblab.net/ttd/)和OMIM数据库(https://www.omim.org)进行检索并导出,然后对3个数据库的所有靶点进行合并、去重。最后,将黄芪主要活性成分的靶点、热应激作用靶点和断奶应激作用靶点进行可视化分析。

1.4 黄芪缓解犊牛热应激和断奶应激蛋白质网络的构建

筛选黄芪主要活性成分以及热应激和断奶应激共有的作用靶点并导入STRING数据库以获取蛋白质-蛋白质互作(protein-protein interactions,PPI)数据,其中Organisms被设定为“Bos taurus”,然后将其导入Cytoscape 3.10.0软件中,选择置信区间>0.40,隐藏游离节点并进一步构建黄芪缓解犊牛热应激和断奶应激的PPI网络。

1.5 黄芪缓解犊牛热应激和断奶应激核心靶基因的筛选

核心靶基因筛选建立在PPI网络的基础上,主要利用Cytoscape 3.10.0软件中的CytoNCA插件的度中心性进行分析,最终保留中心性大于平均值的靶点作为核心靶基因。

1.6 黄芪缓解犊牛热应激和断奶应激核心靶点功能富集分析

将黄芪缓解犊牛热应激和断奶应激的所有靶点进行节点度排序,然后利用David数据库(https://david.ncifcrf.gov)筛选P<0.01的富集结果,其中物种名称被设定为“Bos taurus”。通过KOBAS数据库(http://bioinfo.org/kobas/)和Omicsmart动态在线分析平台(https://demo.omicsmart.com/home.html#/)对富集结果进行可视化。此外,利用Cytoscape 3.10.0软件的ClueGO插件进行基因本体(GO)和京都基因与基因组百科全书(KEGG)分析,进一步从其生物过程、细胞成分及分子功能等方面进行研究,并探讨其作用相关通路。

1.7 基于分子复合物检测(MCODE)的核心基因簇分析

核心基因簇分析建立在在PPI网络的基础上,首先主要是利用Cytoscape 3.10.0软件的MCODE插件进行二次分析,分析过程中遵循软件的默认参数;然后,将筛选到排名靠前的基因簇进行独立网络绘制;最后,利用David数据库对其进行GO富集分析,其中物种名称被设定为“Bos taurus”。

1.8 黄芪缓解犊牛热应激和断奶应激靶向网络的构建

初步整理黄芪缓解犊牛热应激、断奶应激的靶点和KEGG富集到的相关通路,然后将其导入Cytoscape 3.10.0软件中构建黄芪缓解犊牛热应激和断奶应激的靶向网络图,并进行参数调整和美化。

1.9 黄芪活性成分与缓解犊牛热应激和断奶应激核心靶点分子对接验证

从PubChem平台检索并下载黄芪活性成分的2D结构,导入SailVina final 1.0软件进行能量最小化处理:采用MMFF94力场,设置最大迭代步数为2 000,收敛阈值为0.01 kcal/(mol·Å)(1 kcal≈4.186 kJ),生成低能3D构象后以PDB格式导出作为配体。在蛋白质受体准备阶段,将目标基因名称输入RCSB PDB数据库(https://www.rcsb.org)的基因名称检索字段,筛选分辨率≥2.5 Å的晶体结构,下载PDB格式文件后使用PyMOL 3.0软件去除结晶水、离子及杂蛋白,保留完整的蛋白质骨架及活性口袋区域,保留结合自由能<-7 kJ/mol的对接结果[23]。最后,使用PyMOL 3.0软件加载最佳对接构象并保存为PDB文件;通过蛋白质-配体相互作用分析器(https://plip-tool.biotec.tu-dresden.de/plip-web/plip/index)识别结合位点残基,在PyMOL 3.0软件中对关键相互作用进行可视化标注。

2 结果与分析

2.1 黄芪活性成分的筛选

本研究通过TCMSP数据库初步检索到黄芪中的87种活性成分,经限定条件进一步筛选后得到符合要求的20种活性成分,表1收集了这20种活性成分的TCMSP数据库编号、相对分子质量、口服生物利用度和药物相似性等信息。
表1 黄芪活性成分

Table 1 Active components in Astragalus membranaceus

编号
No.
TCMSP数据库编号
TCMSP
database No.
分子名称
Molecule names
相对分子质量
Relative molecular
mass
口服生物利用度
Oral
bioavailability
药物相似性
Drug-
likeness
1 MOL000211 白桦脂酸Mairin 456.78 0.55 0.78
2 MOL000239 华良姜素Jaranol 314.31 0.51 0.29
3 MOL000296 常春藤皂苷元Hederagenin 414.79 0.37 0.75
4 MOL000033 (3S,8S,9S,10R,13R,14S,17R)-10,13-二甲基-17-[(2R,5S)-5-丙-
2-基辛烷-2-基]-2,3,4,7,8,9,11,12,14,15,16,17-
十二氢-1H-环戊二烯[a]菲-3-醇
(3S,8S,9S,10R,13R,14S,17R)-10,13-dimethyl-17-[(2R,5S)-5-propan-
2-yloctan-2-yl]-2,3,4,7,8,9,11,12,14,15,16,17-
dodecahydro-1H-cyclopenta[a]phenanthren-3-ol
428.82 0.36 0.78
5 MOL000354 异鼠李素Isorhamnetin 316.28 0.50 0.31
6 MOL000371 3,9-二-O-甲基尼森香豌豆紫檀酚
3,9-di-O-methylnissolin
314.36 0.54 0.48
7 MOL000374 5'-羟基异微凸剑叶莎醇-2',5'-二-O-葡萄糖苷
5'-hydroxyiso-muronulatol-2',5'-di-O-glucoside
642.67 0.42 0.69
8 MOL000378 7-O-甲基异微凸剑叶莎醇
7-O-methylisomucronulatol
316.38 0.75 0.30
9 MOL000379 9,10-二甲氧基紫檀-3-O-β-D-葡萄糖苷
9,10-dimethoxypterocarpan-3-O-β-D-glucoside
462.49 0.37 0.92
10 MOL000380 (6aR,11aR)-9,10-二甲氧基-6a,11a-二氢-6H-苯并呋喃[3,2-c]色烷-3-醇
(6aR,11aR)-9,10-dimethoxy-6a,11a-dihydro-6H-benzofurano[3,2-c]chromen-3-ol
300.33 0.64 0.42
11 MOL000387 联苯双酯Bifendate 418.38 0.31 0.67
12 MOL000392 刺芒柄花素Formononetin 268.28 0.70 0.21
13 MOL000398 二氢异黄酮Isoflavanone 316.33 1.10 0.30
14 MOL000417 毛蕊异黄酮Calycosin 284.28 0.48 0.24
15 MOL000422 山奈酚Kaempferol 286.25 0.42 0.24
16 MOL000433 叶酸Folic acid 441.45 0.69 0.71
17 MOL000438 (3R)-3-(2-羟基-3,4-二甲氧基苯)色烷-7-醇
(3R)-3-(2-hydroxy-3,4-dimethoxyphenyl)chroman-7-ol
302.35 0.68 0.26
18 MOL000439 异微凸剑叶莎醇-7,2'-二-O-葡萄糖苷Isomucronulatol-7,2'-di-O-glucosiole 626.67 0.49 0.62
19 MOL000442 1,7-二羟基-3,9-二甲氧基紫檀烯1,7-dihydroxy-3,9-dimethoxy pterocarpene 314.31 0.39 0.48
20 MOL000098 槲皮素Quercetin 302.25 0.46 0.28

2.2 黄芪活性成分的作用靶点

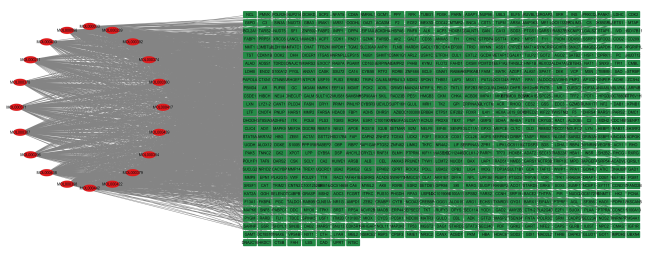
将20种活性成分的所有作用靶点集合起来并去重,最终获得764个靶点。通过Cytoscape 3.10.0软件构建20种活性成分与作用靶点的关系网络(图1),网络中包含784个节点和2 735条连线,以节点的节点度表示与节点连线的数量,其数值大小作为评估活性成分-作用靶点相互作用的标准。值得注意的是,上述20种活性成分的节点度均大于115,表明筛选的这20种活性成分均是黄芪缓解犊牛热应激和断奶应激的关键成分。
图1 黄芪活性成分的作用靶点

GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase;ALB:白蛋白 albumin;INS:胰岛素 insulin;TP53:肿瘤蛋白p53 tumor protein p53;STAT3:信号转导及转录激活因子3 signal transducer and activator of transcription 3;ESR1:雌激素受体1 estrogen receptor 1;FASN:脂肪酸合酶 fatty acid synthase;CYCS:细胞色素C,体细胞 cytochrome C, somatic;PTGS2:前列腺素-内过氧化物合酶2 prostaglandin-endoperoxide synthase 2;MDM2:MDM2原癌基因 MDM2 proto-oncogene。

Fig.1 Action targets of active components in Astragalus membranaceus

仅注释本研究筛选出的10个靶点名称,下图同。Only names of 10 targets screened out in this study were annotated, as shown in the following figures.

2.3 黄芪缓解犊牛热应激和断奶应激的作用靶点

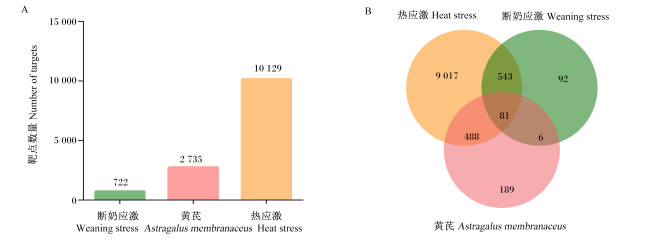
通过GeneCards、TTD和OMIM数据库获取断奶应激和热应激靶点并整合去重,共获得722个断奶应激靶点和10 129个热应激靶点;然后整合上述靶点与黄芪主要活性成分的作用靶点交集,共得到81个交集作用靶点(图2)。
图2 黄芪缓解犊牛热应激和断奶应激的作用靶点整合

A:黄芪缓解犊牛热应激和断奶应激的作用靶点数量 number of action targets by Astragalus membranaceus in alleviating heat stress and weaning stress in calves;B:黄芪缓解犊牛热应激和断奶应激的作用靶点交集 intersection of action targets by Astragalus membranaceus in alleviating heat stress and weaning stress in calves。

Fig.2 Integration of action targets by Astragalus membranaceus in alleviating heat stress and weaning stress in calves

2.4 黄芪缓解犊牛热应激和断奶应激蛋白质网络的构建

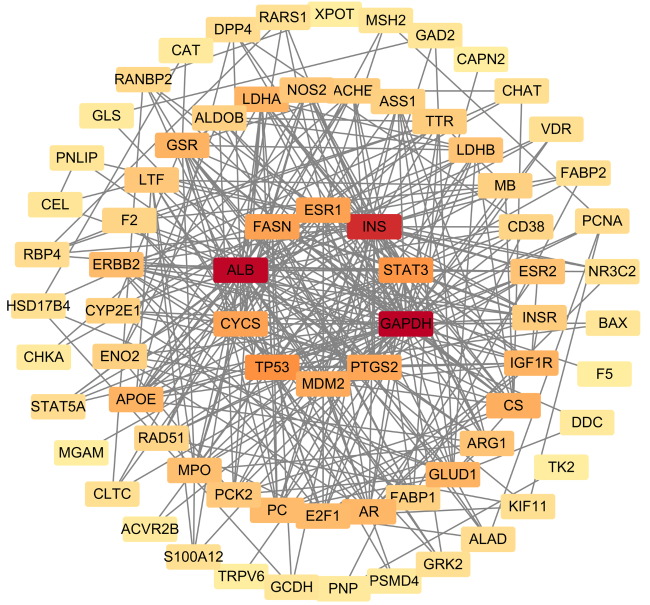
将上述靶点的交集结果导入STRING数据库获取黄芪缓解犊牛热应激和断奶应激的PPI网络信息,该网络包含了74个节点和347条连线,平均节点的节点度为9.38。为了更好地分析黄芪缓解犊牛热应激和断奶应激的作用,本研究将PPI网络信息导入Cytoscape 3.10.0软件并经CytoNCA插件优化(图3)。美化后的PPI网络中节点颜色越深,表明其节点度越大,蛋白质间的相互作用也越强,甘油醛-3-磷酸脱氢酶(GAPDH)、白蛋白(ALB)、胰岛素(INS)、肿瘤蛋白p53(TP53)、信号转导及转录激活因子3(STAT3)、雌激素受体1(ESR1)、脂肪酸合酶(FASN)、细胞色素C,体细胞(CYCS)、前列腺素-内过氧化物合酶2(PTGS2)和MDM2原癌基因(MDM2)是最终获取的10个核心靶基因(表2)。其中,GAPDHALBINS的节点度分别47、46和40,说明它们可能是缓解犊牛热应激和断奶应激的关键靶点。
图3 黄芪缓解犊牛热应激和断奶应激PPI网络构建

Fig.3 Construction of PPI network for Astragalus membranaceus in alleviating heat stress and weaning stress in calves

表2 黄芪缓解犊牛热应激和断奶应激核心靶点信息

Table 2 Information of core targets by Astragalus membranaceus in alleviating heat stress and weaning stress in calves

序号No. 基因Genes 蛋白质标识Uniport ID 名称Names
1 GAPDH P10096 甘油醛-3-磷酸脱氢酶Glyceraldehyde-3-phosphate dehydrogenase
2 ALB P02769 白蛋白Albumin
3 INS P01317 胰岛素Insulin
4 TP53 P67939 肿瘤蛋白p53 Tumor protein p53
5 STAT3 P61635 信号转导及转录激活因子3
Signal transducer and activator of transcription 3
6 ESR1 P49884 雌激素受体1 Estrogen receptor 1
7 FASN F1N647 脂肪酸合酶Fatty acid synthase
8 CYCS P62894 细胞色素C,体细胞Cytochrome C, somatic
9 PTGS2 O62698 前列腺素-内过氧化物合酶2 Prostaglandin-endoperoxide synthase 2
10 MDM2 F1MYE6 MDM2原癌基因MDM2 proto-oncogene

2.5 黄芪缓解犊牛热应激和断奶应激核心靶点功能富集分析

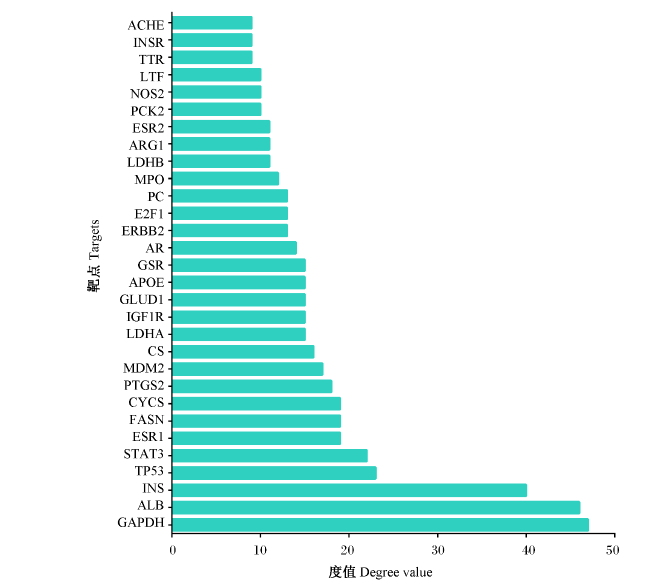
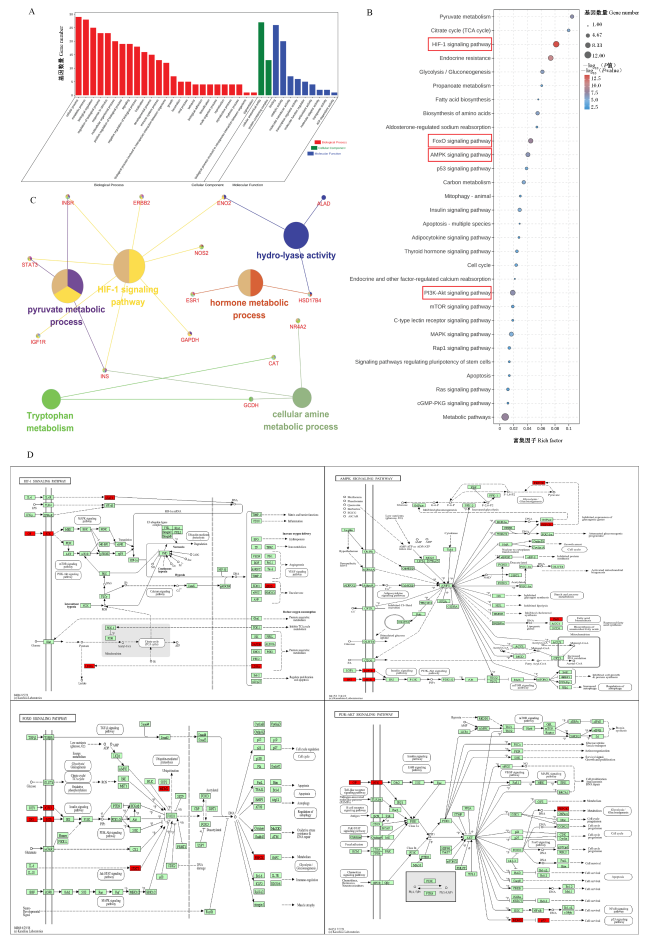
按照节点度对PPI网络中排名前30的靶点进行排序,结果如图4所示。利用David数据库和KOBAS数据库共获得216条GO富集结果和80条KEGG信号通路。然后,根据P值从小到大的顺序排序对前36条GO富集结果和前30条KEGG信号通路进行可视化。GO富集分析中(图5-A),生物过程主要包括细胞过程、代谢过程和生物调节等25条2级条目,细胞组分主要包括细胞解剖实体和含蛋白质的复合物,分子功能主要包括结合、催化活性和分子转导活性等9条2级条目。
图4 黄芪缓解犊牛热应激和断奶应激前30靶点节点度排序

Fig.4 Node degree ranking of top 30 targets by Astragalus membranaceus in alleviating heat stress and weaning stress in calves

图5 黄芪缓解犊牛热应激和断奶应激的作用途径

A:GO富集分析 GO enrichment analysis;B:KEGG富集分析 KEGG enrichment analysis;C:ClueGo富集分析 ClueGo enrichment analysis;D:KEGG富集通路中的靶蛋白定位渲染 target protein localization rendering in KEGG enriched pathways。

Biological Process:生物过程;Cellular Component:细胞组分;Molecular Function:分子功能;cellular process:细胞过程;metabolic process:代谢过程;biological regulation:生物调节;regulation of biological process:生物过程调节;response to stimulus:刺激反应;multicellular organismal process:多细胞生物过程;positive regulation of biological process:生物过程的正向调节;signaling:信号;negative regulation of biological process:生物过程的负向调节;localization:定位;developmental process:发育过程;immune system process:免疫系统过程;biological process involved in interspecies interaction between organisms:涉及生物种间相互作用的生物过程;growth:生长;locomotion:运动;viral process:病毒过程;behavior:行为;biological adhesion:生物黏附;detoxification:解毒;multi-organism process:多生物过程;reproduction:繁殖;reproductive process:生殖过程;rhythmic process:节律过程;biological process involved in intraspecies interaction between organisms:涉及生物种内相互作用的生物过程;pigmentation:色素沉着;cellular anatomical entity:细胞解剖实体;protein-containing complex:含蛋白质的复合体;binding:结合;catalytic activity:催化活性;molecular transducer activity:分子转导活性;transcription regulator activity:转录调节因子活性;molecular function regulator:分子功能调节因子;antioxidant activity:抗氧化活性;molecular adaptor activity:分子衔接子活性;transporter activity:转运蛋白活性;ATP-dependent activity:ATP依赖活性;Pyruvate metabolism:丙酮酸代谢;Citrate cycle (TCA cycle):三羧酸循环;HIF-1 signaling pathway:缺氧诱导因子-1信号通路;Endocrine resistance:内分泌抵抗;Glycolysis/Gluconeogenesis:糖酵解/糖异生;Propanoate metabolism:丙酸代谢;Fatty acid biosynthesis:脂肪酸生物合成;Biosynthesis of amino acids:氨基酸生物合成;Aldosterone-regulated sodium reabsorption:醛固酮调节的钠重吸收;FoxO signaling pathway:叉头框O信号通路;AMPK signaling pathway:单磷酸腺苷活化蛋白激酶信号通路;p53 signaling pathway:p53信号通路;Carbon metabolism:碳代谢;Mitophagy-animal:动物线粒体自噬;Insulin signaling pathway:胰岛素信号通路;Apoptosis-multiple species:细胞凋亡-多物种;Adipocytokine signaling pathway:脂肪细胞因子信号通路;Thyroid hormone signaling pathway:甲状腺激素信号通路;Cell cycle:细胞周期;Endocrine and other factor-regulated calcium reabsorption:内分泌及其他因子调节的钙重吸收;PI3K-Akt signaling pathway:磷脂酰肌醇3-激酶-蛋白激酶B信号通路;mTOR signaling pathway:哺乳动物雷帕霉素靶蛋白信号通路;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;MAPK signaling pathway:丝裂原活化蛋白激酶信号通路;Rap1 signaling pathway:Rap1信号通路;Signaling pathways regulating pluripotency of stem cells:调节干细胞多能性信号通路;Apoptosis:细胞凋亡;Ras signaling pathway:Ras信号通路;cGMP-PKG signaling pathway:环鸟苷酸-蛋白激酶G信号通路;Metabolic pathways:代谢通路;pyruvate metabolic process:丙酮酸代谢过程;hormone metabolic process:激素代谢过程;hydro-lyase activity:水解酶活性;cellular amine metabolic process:细胞胺代谢过程;Tryptophan metabolism:色氨酸代谢。图7同 The same as Fig.7

Fig.5 Action pathways of Astragalus membranaceus in alleviating heat stress and weaning stress in calves

KEGG富集分析中(图5-B),核心靶点主要富集在缺氧诱导因子-1(HIF-1)信号通路、单磷酸腺苷活化蛋白激酶(AMPK)信号通路、叉头框O(FoxO)信号通路和PI3K-Akt信号通路等多条与代谢相关的信号通路中。为了更深入地探讨黄芪活性成分通过关键通路缓解犊牛热应激和断奶应激的作用途径,本研究基于核心靶基因进行了ClueGO富集分析,结果显示(图5-C),这些靶基因在6条通路中显著富集(P<0.05),分别为HIF-1信号通路、水解酶活性、激素代谢过程、丙酮酸代谢过程、色氨酸代谢和细胞胺代谢过程,这表明黄芪可能通过这些关键的信号通路调节犊牛在热应激和断奶应激状态下的代谢进程,进而调节犊牛健康状况。此外,KEGG富集通路中的靶蛋白定位渲染结果表明(图5-D),各靶点蛋白均位于上述重点通路中的多个关键节点位置。

2.6 基于MCODE的核心基因簇分析

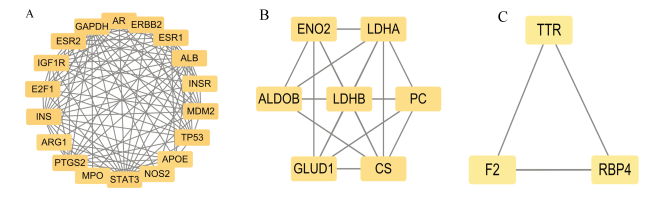
利用Cytoscape 3.10.0软件的MCODE插件在PPI网络基础上分析并获取了3个主要基因簇及其集群互作网络(图6),其中第1个基因簇包含18个基因,第2个基因簇包含7个基因,而第3个基因簇只包含3个基因。由表3可知,GO富集分析结果表明,这3个重点基因簇富集在19条GO条目,功能主要与细胞内雌激素受体信号通路、葡萄糖稳态和细胞增殖调节等相关。
图6 MCODE分析中排名前3的基因簇

Fig.6 Top 3 gene clusters in MCODE analysis

表3 重点基因簇GO富集分析结果

Table 3 Results of GO enrichment analysis of key gene clusters

基因簇Gene clusters GO条目GO terms 描述Description PP-value
GO:0030520 细胞内雌激素受体信号通路Intracellular estrogen receptor signaling pathway 3.64E-05
MCODE1
GO:0042593 葡萄糖稳态Glucose homeostasis 5.18E-05
GO:0042127 细胞增殖调节Regulation of cell proliferation 5.54E-05
GO:0043410 丝裂原活化蛋白激酶级联的正向调节 6.11E-05
Positive regulation of MAPK cascade
GO:0071466 细胞对异生物刺激的反应 3.89E-04
Cellular response to xenobiotic stimulus
GO:0010629 基因表达的负向调节 3.90E-04
Negative regulation of gene expression
GO:0033674 激酶活性的正向调节 5.09E-04
Positive regulation of kinase activity
GO:1902895 RNA聚合酶Ⅱ启动子对初级微小miRNA转录的正向调节 6.16E-04
Positive regulation of pri-miRNA transcription from
RNA polymerase Ⅱ promoter
GO:0004879 RNA聚合酶Ⅱ转录因子活性,配体激活的序列特异性DNA结合 8.78E-06
RNA polymerase Ⅱ transcription factor activity, ligand-
activated sequence-specific DNA binding
GO:0005496 类固醇结合Steroid binding 8.89E-05
GO:0042802 相同蛋白质结合Identical protein binding 9.45E-05
GO:0005009 胰岛素激活的受体活性Insulin-activated receptor activity 2.36E-03
GO:0030284 雌激素受体活性Estrogen receptor activity 3.15E-03
GO:0034056 雌激素反应元件结合Estrogen response element binding 3.15E-03
GO:0001228 转录激活剂活性,RNA聚合酶Ⅱ转录调控区序列特异性结合 3.33E-03
Transcriptional activator activity, RNA polymerase Ⅱ transcription
regulatory region sequence-specific binding
GO:0043559 胰岛素结合Insulin binding 3.94E-03
GO:0061629 RNA聚合酶Ⅱ序列特异性DNA结合转录因子结合 4.98E-03
RNA polymerase Ⅱ sequence-specific DNA
binding transcription factor binding
MCODE2 GO:0004459 L-乳酸脱氢酶活性L-lactate dehydrogenase activity 1.11E-03
MCODE3 GO:0005615 细胞外空间Extracellular space 8.90E-03

2.7 黄芪缓解犊牛热应激和断奶应激靶向网络的构建

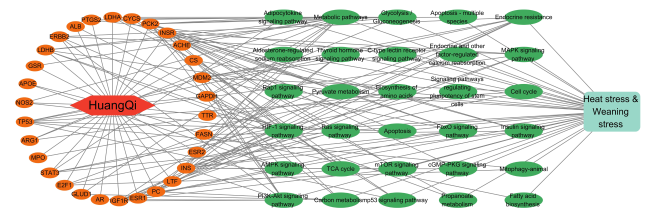
整合黄芪缓解犊牛热应激和断奶应激的靶点和KEGG通路富集结果,并导入Cytoscape 3.10.0软件构建网络和美化,结果如图7所示,该网络中包含62个节点和171条连线,平均节点的节点度为5.52。
图7 黄芪缓解犊牛热应激和断奶应激靶向网络构建

HuangQi:黄芪 Astragalus membranaceus;Heat stress & Weaning stress:热应激和断奶应激。

Fig.7 Construction of targeting network for Astragalus membranaceus in alleviating heat stress and weaning stress in calves

2.8 黄芪活性成分与缓解犊牛热应激和断奶应激的核心靶点分子对接验证

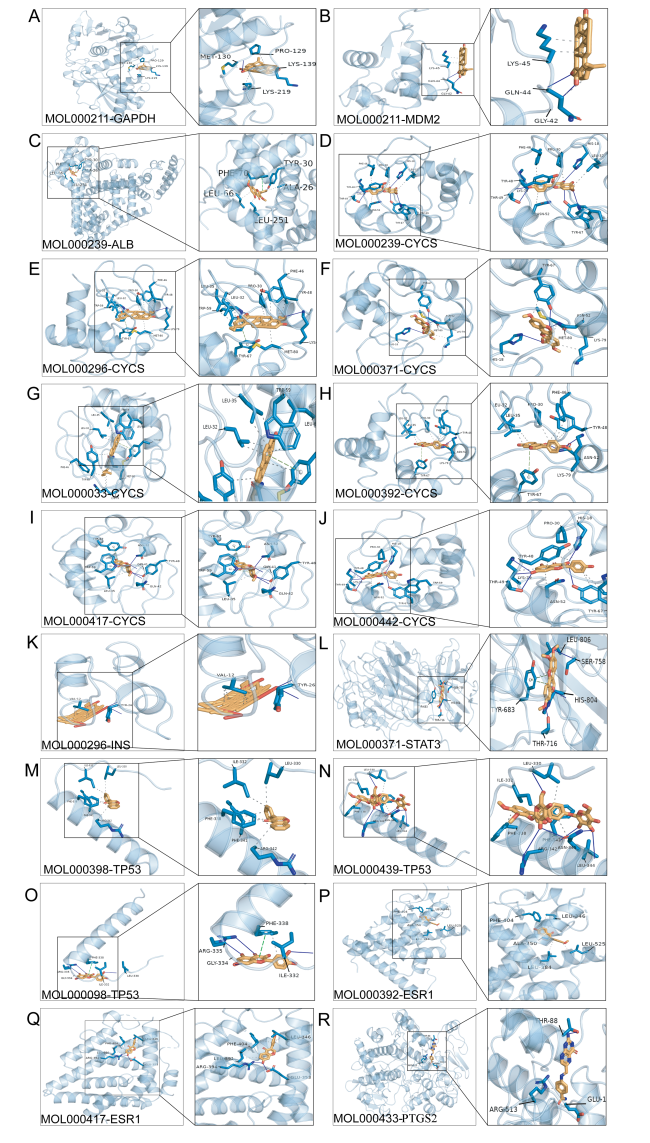
将从TCMSP数据库收集的20个黄芪主要活性成分和筛选得到的10个核心靶点蛋白的PDB ID进行蛋白质与活性分子对接验证,最终筛出结合自由能<-7 kJ/mol的18对分子(表4),这18对分子对接结果很显然极大地缩小了黄芪缓解犊牛热应激和断奶应激的研究范围(图8)。
表4 黄芪活性成分与缓解犊牛热应激和断奶应激的核心靶点分子对接预测

Table 4 Predicted molecular docking of active components in Astragalus membranaceus with core targets for alleviating heat stress and weaning stress in calves

编号
No.
TCMSP数据库编号
TCMSP
database No.
配体
Ligands
受体
Receptors
结合自由能
Binding free
energy/(kJ/mol)
1 MOL000211 白桦脂酸 甘油醛-3-磷酸脱氢酶 -9.90
2 MOL000211 白桦脂酸 MDM2原癌基因 -7.20
3 MOL000239 华良姜素 白蛋白 -9.80
4 MOL000239 华良姜素 细胞色素C,体细胞 -10.20
5 MOL000296 常春藤皂苷元 细胞色素C,体细胞 -14.10
6 MOL000371 3,9-二-O-甲基尼森香豌豆紫檀酚 细胞色素C,体细胞 -9.80
7 MOL000033 (3S,8S,9S,10R,13R,14S,17R)-10,13-
二甲基-17-[(2R,5S)-5-丙-2-基辛烷-
2-基]-2,3,4,7,8,9,11,12,14,15,16,17-
十二氢-1H-环戊二烯[a]菲-3-醇
细胞色素C,体细胞 -12.80
8 MOL000392 刺芒柄花素 细胞色素C,体细胞 -9.40
9 MOL000417 毛蕊异黄酮 细胞色素C,体细胞 -10.00
10 MOL000442 1,7-二羟基-3,9-二甲氧基紫檀烯 细胞色素C,体细胞 -10.20
11 MOL000296 常春藤皂苷元 胰岛素 -10.50
12 MOL000371 3,9-二-O-甲基尼森香豌豆紫檀酚 信号转导及转录激活因子3 -9.80
13 MOL000398 二氢异黄酮 肿瘤蛋白p53 -7.50
14 MOL000439 异微凸剑叶莎醇-7,2'-
二-O-葡萄糖苷
肿瘤蛋白p53 -8.10
15 MOL000098 槲皮素 肿瘤蛋白p53 -7.10
16 MOL000392 刺芒柄花素 雌激素受体1 -8.70
17 MOL000417 毛蕊异黄酮 雌激素受体1 -8.50
18 MOL000433 叶酸 前列腺素-内过氧化物合酶2 -7.50
图8 黄芪活性成分与核心靶点分子对接

Fig.8 Molecular docking of Astragalus membranaceus active components to core targets

3 讨论

网络药理学是一种将计算机技术与药理学相结合的研究方法,应用网络药理学分析药物活性成分并通过关键靶点作用于特定疾病的相关研究已成为药理学研究的重要手段[24-25]。同时,网络药理学能直观地呈现出药物活性成分对信号通路的多重调节途径,对于探究药物的毒副作用、治疗效果和节约研发成本有显著改善作用[24-25]。目前,基于网络药理学分析菟丝子、槲皮素、山奈酚[2,26-27]等在抑制动物热应激和断奶应激中的作用强调了药物成分通过关键靶点和通路改善动物生长性能和健康状况的便捷性和实用性。相对而言,黄芪中众多的活性成分在缓解动物多重应激中有更好的表现和更低的成本[15,21]。因此,本研究面向生产并立足实践,以探究黄芪缓解犊牛热应激和断奶应激的作用机制。

3.1 黄芪缓解犊牛热应激和断奶应激核心靶点

本研究通过整合多个数据库获取了热应激靶点、断奶应激靶点和黄芪活性成分作用靶点,进而筛选出黄芪活性成分同步缓解犊牛热应激和断奶应激的81个共同靶点。其中,白桦脂酸[28]、华良姜素[29]和常春藤皂苷元[30]等20种活性成分在缓解包括热应激在内的多种应激方面具有良好表现,而经PPI网络优化后得到的10个核心靶点均是动物或细胞抵抗多种应激的关键因子。细胞处于应激条件下会导致胞内酶活性下降并加速GAPDH聚集物积累,进而引起线粒体功能障碍和细胞代谢失调,最终引起细胞死亡[31-32]。ALB是冬青多酚改善脂多糖诱导的肝脏组织病理学损伤、抑制仔猪炎症反应和应激状态的关键靶点[33]。INS的靶细胞可以通过产生代谢物激活维持慢性炎症状态的细胞,进而加剧局部和全身细胞应激的产生[33]。热应激状态下的STAT3作为瘦素的纽带能最大程度地保护小鼠精子不受损伤,而且STAT3的存在与瘦素抵抗和睾丸信号传导相关[34]。同时,研究表明,TP53作为重要的促凋亡蛋白能正向调控热应激状态下奶牛细胞的周期性活动,进而影响奶牛的健康生长[35];另一项研究也证实了热应激能显著提升奶山羊乳腺中TP53的表达,进而危害乳房健康和降低产奶量[36]。上述多项证据表明,本研究筛选的核心靶点是黄芪缓解机体应激的关键桥梁。此外,动物的细胞增殖、分化、凋亡和迁移过程也受到这些靶点的综合作用[37-41],由此可以推测黄芪是通过调节动物生长过程中的上述途径来抵抗热应激和断奶应激对机体的损伤作用[36]

3.2 黄芪缓解犊牛热应激和断奶应激核心靶点功能富集分析

GO和KEGG富集分析提示,黄芪主要通过HIF-1、FoxO、PI3K-Akt、AMPK、内分泌抵抗以及机体多条代谢等途径缓解犊牛热应激和断奶应激引发的犊牛生物节律、行为、生长、代谢、免疫、发育和繁殖等生物学变化。研究表明,黄芪多糖能通过激活HIF-1信号通路缓解肠道屏障细胞凋亡并促进肠道干细胞再生,这对于维持肠道分泌细胞完整性、微生物区系稳态和肠道代谢物种类等有重要意义[42]。热应激和断奶应激均会造成犊牛肠道损伤和微生物区系紊乱,由此推测,黄芪活性成分将通过激活HIF-1信号通路抵消这部分负面影响,进而促进犊牛生长、代谢和免疫等过程回归正常水平。FoxO作为转录因子能参与多种生物学过程,包括细胞增殖、细胞周期、凋亡和抗氧化应激等[43]。研究表明,激活FoxO信号通路能调节肿瘤形成、肌肉发育、代谢和寿命[44]。黄芪甲苷Ⅳ能通过激活过氧化物酶体增殖物激活受体γ(PPARγ)-Klotho-FoxO1轴抑制氧化应激,对糖尿病肾病足细胞凋亡起到保护作用[45]。本研究中,黄芪活性成分可能通过FoxO信号通路抑制了由热应激和断奶应激引起的细胞凋亡、氧化应激、代谢及生物节律等生物学过程。PI3K-Akt和AMPK信号通路是2个重要的细胞信号传导通路,分别在细胞代谢、增殖和存活等多个生物学过程中发挥关键作用。黄芪甲苷Ⅳ能靶向正常人胃上皮和人横纹肌肉瘤细胞中的8种关键代谢物来激活环磷酸腺苷和细胞的抗氧化应激反应,这种激活可以进一步刺激PI3K-Akt信号传导,进而抑制经EV71病毒诱导的细胞凋亡和病毒自身的复制,并保证细胞的正常增殖和机体健康发育[46]。此外,加味黄芪赤风汤能通过激活PI3K/Akt/哺乳动物雷帕霉素靶蛋白(mTOR)与AMPK/mTOR信号通路之间的相互作用来保护肾脏,维持足细胞的正常生长和增殖[47]。而黄芪甲苷Ⅳ也能通过AMPK/沉默信息调节因子1(SIRT1)和PI3K/Akt信号通路调节小鼠血脂、葡萄糖、胰岛素抵抗以及氧化应激水平的异常,且黄芪甲苷Ⅳ还能正向调节糖尿病小鼠肠道菌群的丰富度和多样性,并提高肠道内容物丁酸含量[48]。因此,黄芪甲苷Ⅳ通过AMPK的抗糖作用也被认为是其成为抗糖尿病候选药物的关键。再者,黄芪散通过激活AMPK信号通路促进脂肪酸的氧化和抑制胆固醇的合成来改善高脂血症和机体的骨骼肌损伤[49]。这也印证了AMPK信号通路的激活通常与细胞内能量代谢状态的改变有关,而热应激和断奶应激也主要是通过犊牛细胞内能量代谢过程影响犊牛的生长发育和健康状况。由此可见,由高温引起的犊牛热应激和能量失衡与由营养转换引起的犊牛肠道损伤和心理应激通过重叠的“氧化应激-炎症-代谢紊乱”轴,引发生物节律、行为和生长等多维度变化;而黄芪活性成分靶点与通路可能通过“感知-整合-效应”的多层级协同,以PI3K-Akt和AMPK为核心通路,联动HIF-1、FoxO等通路,在能量代谢(GAPDH、INS、FASN)、炎症平衡(ALB、STAT3、PTGS2)、细胞存活(TP53、MDM2、CYCS)、内分泌调节(ESR1)等维度形成网络,针对性缓解热应激和断奶应激引发的生物节律紊乱、行为异常和生长迟滞等多方面的生物学变化。这一网络的关键可能在于“交叉调控”(如PI3K-Akt同时抑制FoxO和激活mTOR)和“应激适配”(不同应激下通路激活的优先级差异),最终实现犊牛应激的整体缓解。整合研究结果,笔者推测黄芪活性成分主要通过激活PI3K-Akt、AMPK、HIF-1等信号通路来平衡由热应激和断奶应激对犊牛造成的负面影响。然而,这一机制需进一步通过体外细胞试验、类器官或动物试验进行验证。

3.3 黄芪缓解犊牛热应激和断奶应激潜力探讨

本研究中,韦恩图展示了20种黄芪活性成分作用于缓解犊牛热应激和断奶应激的靶点数量,其中有81个可同时缓解犊牛热应激和断奶应激的靶点,表明黄芪活性成分的靶向作用能应对同时受2种应激时的共同反应,这是本研究将热应激和断奶应激整合分析的重要原因之一;另分别有488和6个靶点分别对应犊牛热应激和断奶应激,推测这是生产中奶牛热应激和断奶应激的不绝对同步导致的,换句话说,犊牛的热应激季节和断奶季节不一定是重合的。因此,本研究结果主要反映黄芪在夏季高温阶段对犊牛断奶期间的作用机制。同时,热应激和断奶应激引起的生物节律、行为、生长、代谢、免疫、发育和繁殖等生物学过程异常是导致犊牛菌群失调、代谢紊乱和生长缓慢的根本原因,而黄芪活性成分能通过激活PI3K-Akt、AMPK、HIF-1等信号通路有效平衡热应激和断奶应激对犊牛的这些负面影响。虽然本研究结果未经过动物试验验证,但内在机制的探究和得到的18对活性成分与蛋白对接结果已极大地缩小了黄芪缓解犊牛热应激和断奶应激的研究范围,这对于进一步开展动物试验有重要贡献。此外,黄芪作为一种常用的中草药广泛种植于我国的西北半干旱地区[50],且黄芪在可持续性、综合成本、作用广度和安全性等方面均优于多数益生菌和矿物质[16]。因此,在规模化、绿色化养殖趋势下,黄芪作为“天然、可持续、多功能”的应激缓解剂,更符合现代养殖业对“降本、提质、环保”的需求。

4 结论

本研究基于网络药理学和分子对接技术探究了黄芪缓解犊牛热应激和断奶应激的靶点基因互作网络及其功能富集。结果表明,黄芪的众多活性成分有平衡热应激和断奶应激对犊牛造成负面影响的潜力,且PI3K-Akt、AMPK、HIF-1等信号通路的激活是黄芪缓解犊牛热应激和断奶应激的主要途径。值得关注的是,本研究获得的18对活性成分与蛋白对接结果将成为未来动物研究中的重点验证内容。本研究不仅有望促进中药材在畜牧业中的合理应用,还可能为黄芪作为绿色饲料添加剂的配方优化提供靶点依据。
[1]
EFSA Panel on Animal Health and Animal Welfare (AHAW). Welfare of calves[J]. EFSA Journal, 2023, 21(3):e07896.

[2]
ZHANG Z H, ZHAO G R, NIU S, et al. Gastrointestinal microorganisms and blood metabolites in Holstein calves with different heat stress responses in the same hot environment[J]. Microorganisms, 2025, 13(4):801.

DOI

[3]
TURNER L D, RAINA J B, KUZHIUMPARAMBIL U, et al. Inhibiting inositol transport disrupts metabolite profiles and mimics heat stress in a model cnidarian-Symbiodiniaceae symbiosis[J]. Communications Biology, 2025, 8(1):755.

DOI

[4]
刘慧敏, 罗烨, 瞿明仁, 等. 热应激对畜禽肠道免疫功能的影响及其营养调控的研究进展[J]. 动物营养学报, 2025, 37(1):160-168.

DOI

LIU H M, LUO Y, QU M R, et al. Research progress on effects of heat stress on intestinal immune function and nutritional regulation in livestock and poultry[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):160-168. (in Chinese)

DOI

[5]
SINGARAVADIVELAN A, PRASAD A, BALUSAMI C, et al. Navigating the labyrinth of heat stress assessment in dairy cattle:a comprehensive review of methods and emerging technologies[J]. Computers and Electronics in Agriculture, 2025, 237(Pt A):110517.

[6]
VOGT A, VON BORSTEL U K, WAIBLINGER S, et al. Fecal cortisol metabolites reflect transport stress in 3-month-old dairy calves pre-and postweaning:a pilot study[J]. Journal of Dairy Science, 2023, 106(3):2124-2136.

DOI

[7]
PRATES J A M. Nutritional value and health implications of meat from monogastric animals exposed to heat stress[J]. Nutrients, 2025, 17(8):1390.

DOI

[8]
WICKRAMASINGHE H K J P, STEPANCHENKO N, OCONITRILLO M J, et al. Effects of a phytogenic feed additive on weaned dairy heifer calves subjected to a diurnal heat stress bout[J]. Journal of Dairy Science, 2023, 106(9):6114-6127.

DOI

[9]
ARSENOPOULOS K V, TRIANTAFILLOU E, GELASAKIS A I, et al. Deltamethrin application on pre-weaned calves improves feed consumption,stress and fatigue status under heat stress conditions[J]. Pathogens, 2022, 11(1):85.

DOI

[10]
FU J, WANG Z H, HUANG L F, et al. Review of the botanical characteristics,phytochemistry,and pharmacology of Astragalus membranaceus (Huangqi)[J]. Phytotherapy Research, 2014, 28(9):1275-1283.

DOI

[11]
王义翠, 魏炳琦, 陈柳, 等. 黄芪多糖的生物学功能及其在畜禽生产中的应用研究进展[J]. 动物营养学报, 2024, 36(5):2830-2844.

DOI

WANG Y C, WEI B Q, CHEN L, et al. Advances in biological functions of Astragalus polysaccharide and its application in livestock and poultry production[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):2830-2844. (in Chinese)

[12]
SHI Y, SHI X J, ZHAO M M, et al. Pharmacological potential of Astragali Radix for the treatment of kidney diseases[J]. Phytomedicine, 2024,123:155196.

[13]
SHEIK A, KIM K, VARAPRASAD G L, et al. The anti-cancerous activity of adaptogenic herb Astragalus membranaceus[J]. Phytomedicine, 2021,91:153698.

[14]
鲍胡杨, 薄欣宇, 刘金耀, 等. 基于网络药理学和分子对接技术探索黄芪提高家兔抗氧化应激的作用机制[J]. 动物营养学报, 2024, 36(5):3247-3261.

DOI

BAO H Y, BO X Y, LIU J Y, et al. Mechanism of action of milkvetch root in enhancing anti-oxidative stress in rabbits based on network pharmacology and molecular docking technology[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3247-3261. (in Chinese)

DOI

[15]
ZHAO B C, TANG Y X, QIU B H, et al. Astragalus polysaccharide mitigates transport stress-induced hepatic metabolic stress via improving hepatic glucolipid metabolism in chicks[J]. Journal of Animal Science, 2022, 100(9):skac244.

[16]
曾致, 罗羽欣, 董可, 等. 黄芪多糖提取方法、生物学功能及其在动物生产中的应用[J]. 动物营养学报, 2024, 36(8):4872-4880.

DOI

ZENG Z, LUO Y X, DONG K, et al. Extraction method,biological function,and application in animal production of Astragalus polysaccharides[J]. Chinese Journal of Animal Nutrition, 2024, 36(8):4872-4880. (in Chinese)

DOI

[17]
LUO G W, GEBEYEW K, ZHOU C S, et al. The ileal microbiome and mucosal immune profiles in response to dietary supplementation of ultra-grinded Astragalus membranaceus in weaned goats[J]. Frontiers in Microbiology, 2023,14:1309520.

[18]
TANG J L, XIN M, ZHANG L C. Protective effect of Astragalus membranaceus and astragaloside Ⅳ in sepsis-induced acute kidney injury[J]. Aging, 2022, 14(14):5855-5877.

DOI

[19]
JIANG B, YANG Y J, DANG W Z, et al. Astragaloside Ⅳ reverses simvastatin-induced skeletal muscle injury by activating the AMPK-PGC-1α signalling pathway[J]. Phytotherapy Research, 2020, 34(5):1175-1184.

DOI

[20]
MA L, LUO Z Z, CHEN J B, et al. Effect of Astragalus membranaceus root on the serum metabolome of preweaning dairy calves[J]. Agriculture, 2022, 12(6):744-744.

DOI

[21]
WANG F G, ZHAO Y, CHEN S X, et al. Astragaloside Ⅳ alleviates ammonia-induced apoptosis and oxidative stress in bovine mammary epithelial cells[J]. International Journal of Molecular Sciences, 2019, 20(3):600.

DOI

[22]
WANG Z Y, LI M Z, LI W J, et al. Mechanism of action of Daqinjiao decoction in treating cerebral small vessel disease explored using network pharmacology and molecular docking technology[J]. Phytomedicine, 2023,108:154538.

[23]
HSIN K Y, GHOSH S, KITANO H. Combining machine learning systems and multiple docking simulation packages to improve docking prediction reliability for network pharmacology[J]. PLoS One, 2013, 8(12):e83922.

DOI

[24]
谢一平, 杨立杰, 张健, 等. 基于网络药理学探究八角茴香活性成分缓解玉米赤霉烯酮致猪子宫内膜炎的作用机制[J]. 动物营养学报, 2025, 37(4):2788-2800.

DOI

XIE Y P, YANG L J, ZHANG J, et al. Mechanism of active ingredients of star anise in alleviating zearalenone-induced porcine endometritis based on network pharmacology[J]. Chinese Journal of Animal Nutrition, 2025, 37(4):2788-2800. (in Chinese)

DOI

[25]
NOOR F, ASIF M, ASHFAQ U A, et al. Machine learning for synergistic network pharmacology:a comprehensive overview[J]. Briefings in Bioinformatics, 2023, 24(3):bbad120.

[26]
LIU C X, HU S Q, LIU D L, et al. The effect of semen cuscutae flavonoid on Sertoli cells and blood-testis barrier in male infertility:integrating network pharmacology and experimental verification[J]. Pharmaceutical Biology, 2023, 61(1):986-999.

DOI

[27]
LIU D L, LIU S J, HU S Q, et al. Probing the potential mechanism of quercetin and kaempferol against heat stress-induced sertoli cell injury:through integrating network pharmacology and experimental validation[J]. International Journal of Molecular Sciences, 2022, 23(19):11163.

DOI

[28]
XIE W G, HU W G, HUANG Z, et al. Betulinic acid accelerates diabetic wound healing by modulating hyperglycemia-induced oxidative stress,inflammation and glucose intolerance[J]. Burns & Trauma, 2022,10:tkac007.

[29]
CHEN H Y, LI R J, ZHAO F, et al. Betulinic acid increases lifespan and stress resistance via insulin/IGF-1 signaling pathway in Caenorhabditis elegans[J]. Frontiers in Nutrition, 2022,9:960239.

[30]
LI K, WANG Y, NI H Z. Hederagenin upregulates PTPN1 expression in Aβ-stimulated neuronal cells,exerting anti-oxidative stress and anti-apoptotic activities[J]. Journal of Molecular Neuroscience, 2023, 73(11/12):932-945.

DOI

[31]
LAZAREV V F, NIKOTINA A D, SEMENYUK P I, et al. Small molecules preventing GAPDH aggregation are therapeutically applicable in cell and rat models of oxidative stress[J]. Free Radical Biology & Medicine, 2016,92:29-38.

[32]
NAKAJIMA H, ITAKURA M, KUBO T, et al. Glyceraldehyde-3-phosphate dehydrogenase (GAPDH) aggregation causes mitochondrial dysfunction during oxidative stress-induced cell death[J]. Journal of Biological Chemistry, 2017, 292(11):4727-4742.

DOI PMID

[33]
ONYANGO A N. Cellular stresses and stress responses in the pathogenesis of insulin resistance[J]. Oxidative Medicine and Cellular Longevity, 2018,2018:4321714.

[34]
JEREMY M, KHARWAR R K, ROY V K. Synthetic leptin c-fragment peptide minimises heat-induced impairment of spermatogenesis in mice via Stat3 signalling[J]. Theriogenology, 2022,178:40-49.

[35]
ISLAM M A, NOGUCHI Y, TANIGUCHI S, et al. Protective effects of 5-aminolevulinic acid on heat stress in bovine mammary epithelial cells[J]. Animal Bioscience, 2021, 34(6):1006-1013.

DOI

[36]
HOOPER H B, SILVA P D S, DE OLIVEIRA S A, et al. Effect of heat stress in late gestation on subsequent lactation performance and mammary cell gene expression of Saanen goats[J]. Journal of Dairy Science, 2020, 103(2):1982-1992.

DOI PMID

[37]
ZHAO L M, WANG W M, WANG X J, et al. Identification of SNPs and expression patterns of ALB,AHSG and GC genes and their association with growth traits in Hu sheep[J]. Gene, 2023,853:147100.

[38]
BISWAS P, PALAZZO J, SCHLANGER S, et al. Visualizing mitochondrial heme flow through GAPDH in living cells and its regulation by NO[J]. Redox Biology, 2024,71:103120.

[39]
SUN S S, WU Y S, GUO W Y, et al. STAT3/HOTAIR signaling axis regulates HNSCC growth in an EZH2-dependent manner[J]. Clinical Cancer Research, 2018, 24(11):2665-2677.

DOI PMID

[40]
WANG L, ZHENG W Y, YANG J X, et al. Mechanism of Astragalus membranaceus alleviating acquired hyperlipidemia induced by high-fat diet through regulating lipid metabolism[J]. Nutrients, 2022, 14(5):954.

DOI

[41]
MU T, HU H H, MA Y F, et al. Regulation of key genes for milk fat synthesis in ruminants[J]. Frontiers in Nutrition, 2021,8:765147.

[42]
DING Q Q, ZU X P, CHEN W, et al. Astragalus polysaccharide promotes the regeneration of intestinal stem cells through HIF-1 signalling pathway[J]. Journal of Cellular and Molecular Medicine, 2024, 28(3):e18058.

DOI

[43]
RODRIGUEZ-COLMAN M J, DANSEN T B, BURGERING B M T. FOXO transcription factors as mediators of stress adaptation[J]. Nature Reviews Molecular Cell Biology, 2024, 25(1):46-64.

DOI

[44]
ARDEN K C. FoxO:linking new signaling pathways[J]. Molecular Cell, 2004, 14(4):416-418.

DOI

[45]
XING L N, FANG J, ZHU B B, et al. Astragaloside Ⅳ protects against podocyte apoptosis by inhibiting oxidative stress via activating PPARγ-Klotho-FoxO1 axis in diabetic nephropathy[J]. Life Sciences, 2021,269:119068.

[46]
HAO J F, ZHANG X Y, HU R X, et al. Metabolomics combined with network pharmacology reveals a role for astragaloside Ⅳ in inhibiting enterovirus 71 replication via PI3K-AKT signaling[J]. Journal of Translational Medicine, 2024, 22(1):555.

DOI

[47]
ZHAO M M, YIN Y D, YANG B, et al. Ameliorative effects of modified Huangqi Chifeng decoction on podocyte injury via autophagy mediated by PI3K/AKT/mTOR and AMPK/mTOR pathways[J]. Journal of Ethnopharmacology, 2024,321:117520.

[48]
GONG P, XIAO X Y, WANG S, et al. Hypoglycemic effect of astragaloside Ⅳ via modulating gut microbiota and regulating AMPK/SIRT1 and PI3K/AKT pathway[J]. Journal of Ethnopharmacology, 2021,281:114558.

[49]
HAO M J, DANG Y X, ZHOU X X, et al. Effect of Huangqi San on AMPK/ACC/CPT1 pathway in hyperlipidemia rats[J]. China Journal of Chinese Materia Medica, 2018, 43(12):2586-2592.

[50]
范尚瑞, 邵银, 屈盈盈, 等. 了墩黄芪化学成分分析与营养价值评价[J]. 草地学报, 2025, 33(10):3291-3299.

DOI

FAN S R, SHAO Y, QU Y Y, et al. Analysis of the chemical composition and evaluation of the nutritional value of Astragalus pavlovii[J]. Acta Agrestia Sinica, 2025, 33(10):3291-3299. (in Chinese)

Outlines

/