REVIEW

Research Progress on Biological Functions of Plant Polyphenols and Their Role in Heat Stress in Broilers

  • GUO Xuming , 1, 2 ,
  • CHEN Jinglong 1 ,
  • TAO Shiyu 2 ,
  • SHI Shourong , 1, *
Expand
  • 1 Jiangsu Institute of Poultry Sciences, Yangzhou 225125, China
  • 2 College of Animal Science and Technology, Huazhong Agricultural University, Wuhan 430070, China
* professor, E-mail:

Received date: 2025-07-10

  Online published: 2026-02-12

Abstract

Heat stress will induce a series of physiological reactions of broilers, seriously affect their health and production performance, and bring huge economic losses to the industry. Plant polyphenols, one of the most common active components in plant extracts, exhibit significant potential as feed additives for alleviating heat stress in poultry. However, further research is needed to elucidate their complex mechanisms of action and establish optimal dietary supplemental level. This article reviews the mechanism of plant polyphenols discussed from the aspects of anti-oxidation, relieving inflammation and regulating glucose and lipid metabolism, and the application in improving growth performance, meat quality and intestine health in heat-stressed broilers, so as to provide reference for the application of plant polyphenols in broiler breeding.

Cite this article

GUO Xuming , CHEN Jinglong , TAO Shiyu , SHI Shourong . Research Progress on Biological Functions of Plant Polyphenols and Their Role in Heat Stress in Broilers[J]. Chinese Journal of Animal Nutrition, 2026 , 38(2) : 846 -854 . DOI: 10.12418/CJAN2026.066

随着全球温室效应逐年增强以及高密度集约化家禽养殖模式的发展,肉鸡养殖行业所面临的热应激问题越来越严峻[1]。温度是影响家禽生长性能的主要环境因素,而家禽由于汗腺不发达,散热方式有限,对热应激尤为敏感[2]。研究表明,热应激会导致肉鸡采食量减少,免疫力下降,诱发肠道炎症和氧化损伤,严重影响肉鸡的健康和生长性能,给肉鸡养殖业造成巨大的经济损失[3-4]。因此,为了肉鸡养殖业的可持续发展,减少热应激对肉鸡的不良影响具有重要意义。
我国天然植物资源十分丰富,植物提取物作为重要的饲料添加剂具有易获取、绿色安全、不易在动物体内残留等优点,受到畜禽养殖行业的广泛关注[5]。植物多酚(plant polyphenols)是植物提取物中最常见的主要活性成分之一,广泛存在于蔬菜、水果以及茶叶中[6]。目前,已知的植物多酚种类已超8 000种,其中常见的种类有姜黄素、槲皮素、花青素、绿茶儿茶素和白藜芦醇等[7]。植物多酚在抗氧化、抗炎、抗菌、抗癌、提高代谢能力和免疫力等方面发挥着重要作用[8-9]。相关研究显示,植物多酚在调节肠道菌群方面表现出类似益生元的作用,植物多酚进入宿主肠道后,可以改变微生物的组成,从而改善宿主肠道健康,同时肠道微生物将植物多酚转化为更易吸收的小分子代谢物,这些小分子代谢物与食物中存在的代谢物完全不同,它们以这种形式到达血液、组织和大脑,从而发挥生物活性,提高生物利用率[10-11]。植物多酚是天然抗氧化剂,能够减少氧化应激,可以作为一种新型饲料添加剂用于缓解家禽热应激[12]。本文主要从抗氧化、缓解炎症、调节糖和脂代谢等方面综述了植物多酚的作用机制及其在肉鸡热应激中的作用,以期为植物多酚在肉鸡养殖业中的应用提供参考。

1 植物多酚概述

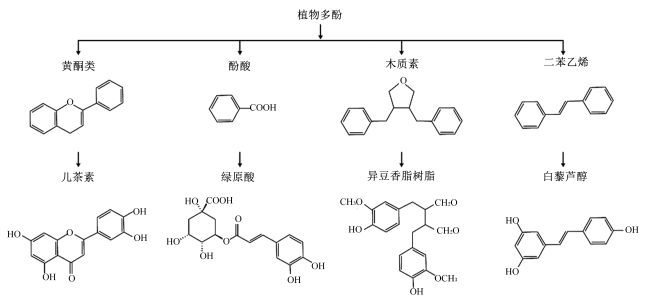
植物多酚是植物的次生代谢产物,结构上包括1个或多个含有至少1个羟基取代基的芳香环,根据其芳香环的结构特性一般可分为类黄酮化合物和非类黄酮化合物[13]。其中,类黄酮化合物是植物多酚种类中最丰富的一类,通常存在于植物的花、叶和种子中,结构上由2个芳香环和1个含氧杂环组成,通过3个碳原子连接[14]。目前,已鉴定出的类黄酮化合物种类多达4 000多种,根据其化学结构中含氧杂环的取代含量和氧化程度可分为黄烷醇、黄烷酮、黄酮、黄酮醇、异黄酮、查耳酮和花青素7个亚类,代表种类有儿茶素、槲皮素、橙皮苷、花青素和大豆苷元等[7,15]。非类黄酮化合物包含木脂素、酚酸和二苯乙烯,其中酚酸常见于水果和谷物中,结构上含有酚羟基和羧基,根据碳骨架的结构和所含羧基的链长可以分为羟基苯甲酸衍生物和羟基肉桂酸衍生物2类,骨架中取代基的位置和性质的变化导致了多种抗氧化剂的产生,其中包括没食子酸、原儿茶酸、绿原酸、阿魏酸、咖啡酸等常见种类[16-17]。木脂素由2个苯丙烷单元组成,具有2,3-二苄基丁烷结构特征,在亚麻籽中含量最为丰富,代表种类有松脂素、异豆香脂树脂等[15,18]。二苯乙烯以立体异构体的形式存在,结构特征是连接酚醛环的双键,来源于葡萄、花生和桑葚等植物,其中以白藜芦醇为代表的植物抗毒素已被广泛研究[19]。代表性植物多酚的化合物结构见图1
图1 代表性植物多酚的化合物结构

Fig.1 Chemical structures of representative plant polyphenols

2 植物多酚的功能

2.1 抗氧化作用

正常情况下,机体内的氧化和抗氧化系统保持平衡的状态,而应激会导致活性氧(ROS)的过量产生以及抗氧化系统受损,从而引起氧化损伤[20]。植物多酚在化学结构上具有多个酚羟基,这些酚羟基能够提供氢原子或者电子,与自由基发生反应,并使其转化为较稳定的分子结构,从而使自由基的链式氧化反应终止,保护组织细胞免受氧化损伤[21-22]。Chen等[23]研究发现,类黄酮通过提供电子、氢原子捕获1,1-二苯基-2-三硝基苯肼(DPPH)和2,2-联氮-二(3-乙基-苯并噻唑-6-磺酸)二铵盐(ABTS)自由基,表现出显著的抗氧化活性。金属离子如铁离子和铜离子,在氧化还原反应中能够催化自由基的产生;植物多酚如黄芩素和槲皮素,能够与这些金属离子发生螯合作用,形成稳定的络合物,降低其催化活性,从而减少自由基[24]
植物多酚还可以通过提高一些内源性抗氧化酶活性,降低ROS含量,进而降低线粒体的氧化应激损伤。研究表明,姜黄素能够显著增加氧化应激小鼠肝脏谷胱甘肽(GSH)含量和超氧化物歧化酶(SOD)活性[25]。Yang等[26]研究发现,白藜芦醇可显著增加人视网膜色素上皮细胞的SOD活性,降低丙二醛(MDA)含量以及细胞凋亡率,从而缓解过氧化氢(H2O2)诱导的细胞氧化损伤。核转录因子红系2相关因子2(Nrf2)是细胞抗氧化途径的重要转录因子,通过与相关酶基因启动子区的抗氧化反应元件结合,调控下游多种抗氧化酶的mRNA与蛋白表达[27]。大量研究表明,植物多酚如绿原酸、姜黄素、表儿茶素等都可以通过激活Nrf2信号通路,增加谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)、SOD等抗氧化酶的活性,以及血红素加氧酶-1(HO-1)、醌氧化还原酶1(NQO1)、Nrf2、SODCAT等抗氧化基因的mRNA表达水平,增强组织细胞的氧化还原状态[28-30]。综上所述,植物多酚主要通过清除ROS、螯合金属离子减少自由基以及调节Nrf2信号通路发挥抗氧化作用。

2.2 缓解炎症

炎症是机体应对病原体感染、物理损伤、化学刺激等有害因素的防御性反应,但是炎症反应的紊乱也会造成机体组织损伤,严重威胁个体的健康。目前,植物多酚已被证明可直接参与调节相关炎症信号通路以及下游炎症因子的mRNA与蛋白表达,进而缓解炎症反应[31]。Ding等[32]在橙皮素的抗炎活性研究中发现,其在体内和体外均能有效降低一氧化氮(NO)、白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α)等炎症因子的mRNA表达水平,表现出优异的抗炎活性。研究表明,白藜芦醇和绿原酸能够降低细胞中Toll样受体4(TLR4)的mRNA表达水平,并抑制核因子-κB抑制因子(IκB)的磷酸化和降解,导致核因子-κB(NF-κB)活化减少,最终降低相关促炎因子的表达,从而缓解肠道细胞炎症[33-34]。丝裂原活化蛋白激酶(MAPK)是细胞内重要的炎症信号通路,由细胞外信号调节激酶(ERK)、c-Jun氨基末端激酶(JNK)和p38丝裂原活化蛋白激酶激酶(p38 MAPK)组成,调节包括增殖、分化和凋亡在内的多种细胞活动[35]。相关研究显示,绿原酸通过抑制ERK1/2、p38 MAPK和JNK的磷酸化调控MAPK/ERK/JNK信号通路相关蛋白的表达,减轻葡聚糖硫酸钠(DSS)诱导的小鼠肠道炎症和细胞凋亡[36]。同样,姜黄素能够降低诱导型一氧化氮合酶(iNOS)和环氧化酶2(COX2)等促炎因子的表达,并通过抑制IκBα磷酸化和p38 MAPK激活抑制NF-κB和MAPK信号传导,从而发挥抗炎作用[37]。因此,植物多酚通过调控NF-κB和MAPK等信号通路抑制炎症级联反应,从而缓解炎症。

2.3 调节糖和脂代谢

植物多酚在调节糖和脂代谢方面发挥着重要作用。研究表明,红酒多酚可显著降低人血浆中甘油三酯(TG)、总胆固醇(T-CHO)和高密度脂蛋白胆固醇(HDL-C)含量[38];葡萄籽原花青素可提高断奶仔猪空肠中包括淀粉酶和脂肪酶在内的消化酶活性[39]。在饲粮中添加0.45%的阿魏酸后,断奶仔猪肝脏组织中TG含量显著降低,激素敏感脂肪酶(HSL)、肉碱棕榈酰基转移酶1B(CPT1B)和过氧化物酶体增殖激活受体α(PPARα)的mRNA表达水平显著增加,阿魏酸通过调节肝脏脂肪分解和脂肪酸β-氧化改善了仔猪的脂质代谢[40]。阿魏酸还能够降低肝脏葡萄糖-6-磷酸酶(G6Pase)和磷酸烯醇式丙酮酸羧激酶(PEPCK)活性,增加葡萄糖激酶(GK)活性,并改善胰腺β-细胞功能,通过调节相关酶的活性和糖原的产生降低血糖水平[41]
Chen等[42]研究结果显示,饲粮中添加1 000 mg/kg绿原酸显著提高了断奶仔猪十二指肠和回肠中乳糖酶、蔗糖酶、麦芽糖酶等二糖酶和碱性磷酸酶(AKP)活性以及空肠中钠-葡萄糖协同转运蛋白1(SGLT1)和葡萄糖转运蛋白2(GLUT2)的mRNA表达水平,改善了仔猪肠道的能量代谢。此外,绿原酸还可以通过上调参与脂肪酸代谢、丙酮酸代谢和丙酸代谢的相关蛋白表达,影响细胞脂质代谢,并作为胰岛素促分泌剂增加细胞内钙离子浓度和葡萄糖转运相关蛋白的表达,发挥降血糖的作用[43-44]。植物多酚也可以直接作用于脂肪细胞。研究发现,浓度高于10 μmol/L的没食子儿茶素没食子酸酯处理会显著降低脂肪细胞活力以及过氧化物酶体增殖激活受体γ(PPARγ)和脂联素的蛋白表达水平,在脂肪细胞中显示细胞毒性[45]。植物多酚通过诱导磷脂酰肌醇3-激酶(PI3K)、蛋白激酶B(Akt)、腺苷酸活化蛋白激酶(AMPK)和下游蛋白的磷酸化,激活PI3K和AMPK等信号通路,抑制哺乳动物雷帕霉素靶蛋白(mTOR)信号传导以及乙酰辅酶A羧化酶1(ACC1)、脂肪酸合酶(FAS)、固醇调节元件结合蛋白1c(SREBP1c)和果糖-1,6-二磷酸酶(FBP)等蛋白的表达,增加糖原合酶(GS)、己糖激酶(HK)、磷酸果糖激酶(PFK)、醛缩酶等蛋白的表达,从而抑制脂质和葡萄糖的生成,改善细胞内脂质沉积和血糖代谢异常[46-49]。综上所述,植物多酚通过调节胰腺β-细胞和脂肪细胞的活性、调控相关信号通路活化以及下游蛋白表达,调节糖和脂代谢过程。

3 植物多酚在改善肉鸡热应激中的作用

3.1 植物多酚对热应激肉鸡生长性能的影响

植物多酚因其来源广泛、功能多样且对动物健康有益而备受关注,在饲粮中添加多酚类物质可以缓解热应激对肉鸡生长性能的不良影响,改善肉鸡的采食量和饲料利用率[12]。He等[50]研究发现,基础饲粮中添加200、350和500 mg/kg白藜芦醇均显著改善了热应激肉鸡的平均日增重,并降低了直肠温度,较高添加水平的白藜芦醇能够更有效地减轻热应激造成的不良影响。在饲喂添加了600 mg/kg表没食子儿茶素没食子酸酯的饲粮后,热应激肉鸡表现出更高的平均日增重和采食量,生长性能显著提高[51]。饲粮中添加1 g/kg富姜辣素的生姜提取物能够改善热应激肉鸡的体重、平均日增重以及饲料转化率,通过提高肉鸡组织器官的抗氧化酶活性缓解热应激导致的生长性能受损[52]。研究发现,饲粮中添加50和100 mg/kg的姜黄素可显著提高热应激肉鸡的饲料转化率,逆转热应激导致的血清MDA和皮质酮含量的异常变化,增加肝脏线粒体GSH含量以及GSH-Px、谷胱甘肽S-转移酶(GST)、γ-谷氨酰半胱氨酸连接酶(γ-GCL)活性,并调控Nrf2信号通路相关基因的表达,通过增强肉鸡对热应激的抵抗力改善生长性能[53]
此外,植物多酚还可以通过调节肉鸡热休克蛋白的表达发挥生长调控作用。Liu等[54]研究发现,饲粮中添加200、400和600 mg/kg的白藜芦醇减弱了热应激诱导的黑骨鸡法氏囊和脾脏热休克蛋白27(Hsp27)、热休克蛋白70(Hsp70)和热休克蛋白90(Hsp90)的mRNA过表达,并增加了胸腺中Hsp27和Hsp90的mRNA低表达,白藜芦醇剂量依赖性地通过调节免疫器官中热休克蛋白的表达,改善了热应激肉鸡的生长性能。以上研究显示,不同种类的植物多酚主要是通过增强肉鸡的抗氧化能力和免疫功能,改善组织器官对营养物质的吸收和利用,提高肉鸡的生长性能。在这一过程中,植物提取物由于成分复杂,发挥活性所需的添加水平更高。

3.2 植物多酚对热应激肉鸡肉品质的影响

热应激会在肉鸡生长发育阶段影响其肌肉的生长,导致肉品质的下降,而植物多酚有助于缓解热应激的不良影响。研究显示,植物多酚可以增加肉鸡肌肉不饱和脂肪酸的含量以及系水力,通过缓解肌肉氧化应激提高肉鸡肉品质[55]。Zhao等[56]研究表明,饲粮中补充400 mg/kg表没食子儿茶素没食子酸酯显著降低了肉鸡肌肉的亮度值和乳酸、MDA含量以及Kelc样ECH相关蛋白1(Keap1)的mRNA表达水平,同时提高了肌肉红度值、24 h pH、SOD活性以及Nrf2和NQO1的mRNA表达水平,通过提高急性热应激肉鸡肌肉的抗氧化能力,改善肉品质。研究发现,饲粮中添加1.00和1.25 g/kg富含植物多酚的青蒿提取物可显著提高热应激肉鸡肌肉红度值和系水力,保护线粒体功能从而改善肉品质[57]。同样的,白藜芦醇和芦丁可通过提高热应激肉鸡肌肉的红度值、系水力和24 h pH,降低亮度值和MDA含量,调节相关抗氧化酶的活性并改善肉鸡胸肌的线粒体结构和功能,从而提高肉鸡肉品质[58-59]。Akbarian等[60]研究显示,饲粮中添加200和400 mg/kg富含香芹酚和百里香酚的牛至精油能够显著增加热应激肉鸡胸肌的红度值和GSP-Px活性,减少肌肉脂质过氧化,从而提高肌肉氧化稳定性,并且其作用会随着热应激处理时间而变化。在对绿原酸的研究中发现,饲粮中添加500和1 000 mg/kg杜仲叶绿原酸提取物不仅可以减轻热应激对肉鸡生长性能和肉品质的不利影响,还提高了肉鸡胸肌的氧化稳定性和多不饱和脂肪酸含量,而1 000 mg/kg的添加水平表现出更稳定的抗应激活性[61]。综上所述,植物多酚具有较强的抗氧化活性,通过干预自由基的产生并增强抗氧化酶的活性,调节线粒体的功能,进而调节肌肉的抗氧化能力和脂肪酸谱,改善热应激诱导的抗氧化损伤和能量代谢紊乱,提高肉鸡肉品质。此外,不同提取工艺的提取物对肉品质的影响不尽相同,纯度较高的黄酮类物质则表现出更强的生物学活性。

3.3 植物多酚对热应激肉鸡肠道健康的影响

肠道不仅是营养物质消化和吸收的主要场所,也是机体最大的免疫器官,而高温应激会破坏肉鸡肠道结构和肠道黏膜的完整性,增加肠道通透性,导致肉鸡对营养物质的吸收能力减弱,肠道微生态被破坏,更易受到有害物质的侵袭,从而影响肠道健康[62]。相关研究显示,肠道是植物多酚发挥功能的主要场所,植物多酚能够改善肉鸡肠道形态,增加肠黏膜抗氧化能力,抑制炎症反应,保护肠道屏障,从而减轻热应激肉鸡的肠道损伤[63]。Liu等[64]研究表明,饲粮中添加400 mg/kg白藜芦醇可改善热应激造成的黑骨鸡空肠黏膜形态损伤,下调空肠黏膜TLR4、JNKp38 MAPK和半胱天冬蛋白酶3(Caspase3)的表达,从而抑制TLR4/MAPK信号通路,增加闭合蛋白(Occludin)、闭锁小带蛋白-1(ZO-1)和封闭蛋白1(Claudin1)的蛋白表达水平,并降低髓系分化因子88(MYD88)、TNF-α和白细胞介素-1β(IL-1β)的蛋白表达水平,通过调节黏膜损伤和炎症反应保护热应激肉鸡肠道健康。此外,饲粮中添加400 mg/kg白藜芦醇能够改善热应激黑骨鸡肠道绒毛形态,增加杯状细胞和淋巴细胞的数量,通过降低Hsp70、Hsp90和NF-κB的mRNA和蛋白表达水平,增加上皮细胞中表皮生长因子(EGF)的mRNA和蛋白表达水平,从而保护肉鸡肠道健康[65]。目前的研究表明,植物多酚特别是白藜芦醇能够增强肠道的抗氧化能力,抑制炎症反应,通过改善肠道结构和黏膜屏障的完整性,缓解热应激造成的肉鸡肠道损伤。
肠道微生物群的稳态与肠道健康息息相关,微生态失调可能导致多种疾病的发生。研究显示,饲粮中添加200 mg/kg的柠檬精油增加了热应激肉鸡的绒毛高度、隐窝深度和盲肠中乳酸菌的丰度,降低了大肠杆菌的丰度,改善了肠道的组织结构和微生物群落组成[66]。Yang等[67]研究表明,饲粮中添加75、150、300和600 mg/kg鞣花酸能够增加热应激肉鸡空肠和回肠ZO-1、Claudin1、Nrf2、HO-1等的mRNA表达水平和SOD、CAT、GSH-Px等抗氧化酶的活性以及盲肠中乳酸菌的丰度,减少盲肠中链球菌、微球菌、弯曲杆菌等病原菌的定植,通过提高肠道屏障功能和抗氧化能力并调节肠道微生物群,保护肠道健康。饲粮中的植物多酚及其进入肠道后的代谢物能够促进乳酸杆菌和双歧杆菌等主要益生菌种群数量的增加,同时抑制大肠杆菌和幽门螺杆菌的生长,最终通过调节促炎免疫反应改善热应激肉鸡肠道屏障功能[68-69]。综上所述,植物多酚主要通过调节肠道微生物的群落组成改善热应激肉鸡的肠道健康,但植物多酚与肠道菌群相互作用机制仍需不断研究。

3.4 植物多酚在实际生产中的应用及局限性

植物多酚生物学活性丰富,绿色安全,且在体无残留。然而植物多酚目前在生产上的研究存在一定的局限性,黄酮类物质多集中于其抗氧化机制的研究,而二苯乙烯代表种类白藜芦醇在热应激肉鸡生长性能及肠道健康方面研究较广[59,69]。类黄酮和酚酸类植物多酚由于种类繁多,在植物体中分布范围广,有望在缓解肉鸡热应激方面发挥更大的作用。此外,饲粮中植物多酚对热应激肉鸡不同组织器官的影响呈现复杂规律,常受到肉鸡日龄、组织功能以及热应激处理时间的影响。结合上述研究,植物多酚在饲粮中的适宜添加水平为300~600 mg/kg,植物提取物中植物多酚的纯度相对较低,因此添加水平多为1 g/kg及以上。肉鸡育肥期即21~42日龄生长发育快速,在饲粮中添加植物多酚能够改善热应激肉鸡对营养物质的吸收与利用,同时提升其抗应激能力,以逆转养殖中热应激导致的生长性能下降[53]。植物多酚在生物体内利用度较低,不同形式的植物多酚在体内表现出的生物活性也不尽相同,部分精油会对肠壁造成刺激性作用,导致营养物质的利用率降低[66]。不同提取物之间由于所含成分的复杂性以及提取工艺的差异,导致其功能研究也存在局限性。饲料添加剂缓解热应激的措施仍需不断地研究完善。

4 小结与展望

热应激是近些年来家禽养殖中最严重的环境影响因素之一,对家禽生长性能、肉品质和肠道健康等方面都会造成不同程度的危害。植物多酚作为饲料添加剂具有丰富的生物学活性,然而目前植物多酚在家禽上的应用研究尚不完善,存在着来源、组分以及处理方式上的差异,各种植物多酚物质的协同作用研究相对较少,但随着研究的不断深入,植物多酚有望在缓解肉鸡热应激方面发挥更大的作用。未来仍需进一步探究植物多酚在家禽热应激中复杂的作用机制以及在饲粮中的适宜添加水平,提高其饲用价值,并探索植物多酚在联合治疗方面的应用潜力,为我国畜牧业绿色可持续发展提供更可靠的科学依据。
[1]
FARAG M R, ALAGAWANY M. Physiological alterations of poultry to the high environmental temperature[J]. Journal of Thermal Biology, 2018,76:101-106.

[2]
LIU L L, REN M Y, REN K, et al. Heat stress impacts on broiler performance:a systematic review and Meta-analysis[J]. Poultry Science, 2020, 99(11):6205-6211.

DOI

[3]
JIMOH O A, DARAMOLA O T, OKIN-AMINU H O, et al. Performance, hemato-biochemical indices and oxidative stress markers of broiler chicken fed phytogenic during heat stress condition[J]. Journal of Animal Science and Technology, 2022, 64(5):970-984.

DOI PMID

[4]
LAN R X, LI Y X, CHANG Q Q, et al. Dietary chitosan oligosaccharides alleviate heat stress-induced intestinal oxidative stress and inflammatory response in yellow-feather broilers[J]. Poultry Science, 2020, 99(12):6745-6752.

DOI PMID

[5]
王贝贝, 郝二英, 周建民, 等. 植物提取物的生物学功能及其在家禽生产上的应用[J]. 中国家禽, 2025, 47(9):119-127.

WANG B B, HAO E Y, ZHOU J M, et al. Biological function of plant extracts and their application in poultry production[J]. China Poultry, 2025, 47(9):119-127. (in Chinese)

[6]
D’ARCHIVIO M, FILESI C, DI BENEDETTO R, et al. Polyphenols, dietary sources and bioavailability[J]. Annali dell’Istituto Superiore di Sanità, 2007, 43(4):348-361.

[7]
HOSSEN I, HUA W, TING L, et al. Phytochemicals and inflammatory bowel disease:a review[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(8):1321-1345.

DOI

[8]
LI H, CHRISTMAN L M, LI R Q, et al. Synergic interactions between polyphenols and gut microbiota in mitigating inflammatory bowel diseases[J]. Food & Function, 2020, 11(6):4878-4891.

[9]
ARAVIND S M, WICHIENCHOT S, TSAO R, et al. Role of dietary polyphenols on gut microbiota,their metabolites and health benefits[J]. Food Research International, 2021,142:110189.

[10]
FILOSA S, DI MEO F, CRISPI S. Polyphenols-gut microbiota interplay and brain neuromodulation[J]. Neural Regeneration Research, 2018, 13(12):2055-2059.

DOI PMID

[11]
CARDONA F, ANDRÉS-LACUEVA C, TULIPANI S, et al. Benefits of polyphenols on gut microbiota and implications in human health[J]. The Journal of Nutritional Biochemistry, 2013, 24(8):1415-1422.

DOI

[12]
HU R Z, HE Y J, AROWOLO M A, et al. Polyphenols as potential attenuators of heat stress in poultry production[J]. Antioxidants, 2019, 8(3):67.

DOI

[13]
LAMPORT D J, WILLIAMS C M. Polyphenols and cognition in humans:an overview of current evidence from recent systematic reviews and Meta-analyses[J]. Brain Plasticity, 2021, 6(2):139-153.

DOI

[14]
FRAGA C G, GALLEANO M, VERSTRAETEN S V, et al. Basic biochemical mechanisms behind the health benefits of polyphenols[J]. Molecular Aspects of Medicine, 2010, 31(6):435-445.

DOI PMID

[15]
BEŠLO D, GOLUBIĆ N, RASTIJA V, et al. Antioxidant activity,metabolism,and bioavailability of polyphenols in the diet of animals[J]. Antioxidants, 2023, 12(6):1141.

DOI

[16]
CHEN J, HUANG Z Y, CAO X H, et al. Plant-derived polyphenols in sow nutrition:an update[J]. Animal Nutrition, 2023,12:96-107.

[17]
LOSADA-BARREIRO S, BRAVO-DÍAZ C. Free radicals and polyphenols:the redox chemistry of neurodegenerative diseases[J]. European Journal of Medicinal Chemistry, 2017,133:379-402.

[18]
BEŠLO D, DOŠLIĆ G, AGIĆ D, et al. Polyphenols in ruminant nutrition and their effects on reproduction[J]. Antioxidants, 2022, 11(5):970.

DOI

[19]
MENG T T, XIAO D F, MUHAMMED A, et al. Anti-inflammatory action and mechanisms of resveratrol[J]. Molecules, 2021, 26(1):229.

DOI

[20]
ZOROV D B, JUHASZOVA M, SOLLOTT S J. Mitochondrial reactive oxygen species (ROS) and ROS-induced ROS release[J]. Physiological Reviews, 2014, 94(3):909-950.

DOI PMID

[21]
CROZIER A, JAGANATH I B, CLIFFORD M N. Dietary phenolics:chemistry,bioavailability and effects on health[J]. Natural Product Reports, 2009, 26(8):1001-1043.

DOI

[22]
GULCIN I. Antioxidants and antioxidant methods:an updated overview[J]. Archives of Toxicology, 2020, 94(3):651-715.

DOI

[23]
CHEN G L, FAN M X, WU J L, et al. Antioxidant and anti-inflammatory properties of flavonoids from lotus plumule[J]. Food Chemistry, 2019,277:706-712.

[24]
SANDOVAL-ACUÑA C, FERREIRA J, SPEISKY H. Polyphenols and mitochondria:an update on their increasingly emerging ROS-scavenging independent actions[J]. Archives of Biochemistry and Biophysics, 2014,559:75-90.

[25]
SINGH S, DAS ROY L, GIRI S. Curcumin protects metronidazole and X-ray induced cytotoxicity and oxidative stress in male germ cells in mice[J]. Prague Medical Report, 2013, 114(2):92-102.

PMID

[26]
YANG Y, WU Z Z, CHENG Y L, et al. Resveratrol protects against oxidative damage of retinal pigment epithelium cells by modulating SOD/MDA activity and activating Bcl-2 expression[J]. European Review for Medical and Pharmacological Sciences, 2019, 23(1):378-388.

[27]
KOBAYASHI M, YAMAMOTO M. Molecular mechanisms activating the Nrf2-Keap1 pathway of antioxidant gene regulation[J]. Antioxidants & Redox Signaling, 2005, 7(3/4):385-394.

[28]
XIE K H, SUN Y X, DENG L L, et al. Effects of dietary chlorogenic acid supplementation on growth performance,meat quality,and muscle flavor substances in finishing pigs[J]. Foods, 2023, 12(16):3047.

DOI

[29]
ZHANG L G, ZHANG J Q, YAN E F, et al. Dietary supplemented curcumin improves meat quality and antioxidant status of intrauterine growth retardation growing pigs via Nrf2 signal pathway[J]. Animals, 2020, 10(3):539.

DOI

[30]
LAN X, HAN X N, LI Q, et al. (-)-Epicatechin,a natural flavonoid compound,protects astrocytes against hemoglobin toxicity via Nrf2 and AP-1 signaling pathways[J]. Molecular Neurobiology, 2017, 54(10):7898-7907.

DOI

[31]
BYUN E H, FUJIMURA Y, YAMADA K, et al. TLR4 signaling inhibitory pathway induced by green tea polyphenol epigallocatechin-3-gallate through 67-kDa laminin receptor[J]. The Journal of Immunology, 2010, 185(1):33-45.

DOI

[32]
DING H W, HUANG A L, ZHANG Y L, et al. Design,synthesis and biological evaluation of hesperetin derivatives as potent anti-inflammatory agent[J]. Fitoterapia, 2017,121:212-222.

[33]
PANARO M A, CAROFIGLIO V, ACQUAFREDDA A, et al. Anti-inflammatory effects of resveratrol occur via inhibition of lipopolysaccharide-induced NF-κB activation in Caco-2 and SW480 human colon cancer cells[J]. British Journal of Nutrition, 2012, 108(9):1623-1632.

DOI

[34]
LYU C C, JI X Y, CHE H Y, et al. CGA alleviates LPS-induced inflammation and milk fat reduction in BMECs through the NF-κB signaling pathway[J]. Heliyon, 2024, 10(3):e25004.

DOI

[35]
KIM E K, CHOI E J. Pathological roles of MAPK signaling pathways in human diseases[J]. Biochimica et Biophysica Acta, 2010, 1802(4):396-405.

DOI PMID

[36]
GAO W Y, WANG C H, YU L, et al. Chlorogenic acid attenuates dextran sodium sulfate-induced ulcerative colitis in mice through MAPK/ERK/JNK pathway[J]. BioMed Research International, 2019,2019:6769789.

[37]
YU Y Y, SHEN Q, LAI Y H, et al. Anti-inflammatory effects of curcumin in microglial cells[J]. Frontiers in Pharmacology, 2018,9:386.

[38]
QUEIPO-ORTUÑO M I, BOTO-ORDÓÑEZ M, MURRI M, et al. Influence of red wine polyphenols and ethanol on the gut microbiota ecology and biochemical biomarkers[J]. The American Journal of Clinical Nutrition, 2012, 95(6):1323-1334.

DOI

[39]
FANG L Y, LI M Y, ZHAO L, et al. Dietary grape seed procyanidins suppressed weaning stress by improving antioxidant enzyme activity and mRNA expression in weanling piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(4):1178-1185.

DOI PMID

[40]
WANG Y X, CHEN X L, HUANG Z Q, et al. Dietary ferulic acid supplementation improves antioxidant capacity and lipid metabolism in weaned piglets[J]. Nutrients, 2020, 12(12):3811.

DOI

[41]
LI X, WU J X, XU F X, et al. Use of ferulic acid in the management of diabetes mellitus and its complications[J]. Molecules, 2022, 27(18):6010.

DOI

[42]
CHEN J L, CHEN D W, YU B, et al. Chlorogenic acid attenuates oxidative stress-induced intestinal mucosa disruption in weaned pigs[J]. Frontiers in Veterinary Science, 2022,9:806253.

[43]
LE Y J, HE L Y, LI S, et al. Chlorogenic acid exerts antibacterial effects by affecting lipid metabolism and scavenging ROS in Streptococcus pyogenes[J]. FEMS Microbiology Letters, 2022, 369(1):fnac061.

[44]
SANCHEZ M B, MIRANDA-PEREZ E, VERJAN J C G, et al. Potential of the chlorogenic acid as multitarget agent:insulin-secretagogue and PPAR α/γ dual agonist[J]. Biomedicine & Pharmacotherapy, 2017,94:169-175.

[45]
SUNG H Y, HONG C G, SUH Y S, et al. Role of (-)-epigallocatechin-3-gallate in cell viability,lipogenesis,and retinol-binding protein 4 expression in adipocytes[J]. Naunyn-Schmiedeberg’s Archives of Pharmacology, 2010, 382(4):303-310.

DOI

[46]
HASEI S, YAMAMOTOYA T, NAKATSU Y, et al. Carnosic acid and carnosol activate AMPK,suppress expressions of gluconeogenic and lipogenic genes,and inhibit proliferation of HepG2 cells[J]. International Journal of Molecular Sciences, 2021, 22(8):4040.

DOI

[47]
LI D M, CUI Y, WANG X J, et al. Apple polyphenol extract alleviates lipid accumulation in free-fatty-acid-exposed HepG2 cells via activating autophagy mediated by SIRT1/AMPK signaling[J]. Phytotherapy Research, 2021, 35(3):1416-1431.

DOI PMID

[48]
ZHANG W Y, LEE J J, KIM I S, et al. 7-O-methylaromadendrin stimulates glucose uptake and improves insulin resistance in vitro[J]. Biological and Pharmaceutical Bulletin, 2010, 33(9):1494-1499.

DOI

[49]
HUANG D W, CHANG W C, WU J S B, et al. Vescalagin from pink wax apple [Syzygium samarangense (Blume) merrill and perry] alleviates hepatic insulin resistance and ameliorates glycemic metabolism abnormality in rats fed a high-fructose diet[J]. Journal of Agricultural and Food Chemistry, 2016, 64(5):1122-1129.

DOI

[50]
HE S P, LI S, AROWOLO M A, et al. Effect of resveratrol on growth performance,rectal temperature and serum parameters of yellow-feather broilers under heat stress[J]. Animal Science Journal, 2019, 90(3):401-411.

DOI

[51]
XUE B, SONG J, LIU L Z, et al. Effect of epigallocatechin gallate on growth performance and antioxidant capacity in heat-stressed broilers[J]. Archives of Animal Nutrition, 2017, 71(5):362-372.

DOI PMID

[52]
WEN C, LIU Y, YE Y W, et al. Effects of gingerols-rich extract of ginger on growth performance,serum metabolites,meat quality and antioxidant activity of heat-stressed broilers[J]. Journal of Thermal Biology, 2020,89:102544.

[53]
ZHANG J F, BAI K W, SU W P, et al. Curcumin attenuates heat-stress-induced oxidant damage by simultaneous activation of GSH-related antioxidant enzymes and Nrf2-mediated phase Ⅱ detoxifying enzyme systems in broiler chickens[J]. Poultry Science, 2018, 97(4):1209-1219.

DOI

[54]
LIU L L, HE J H, XIE H B, et al. Resveratrol induces antioxidant and heat shock protein mRNA expression in response to heat stress in black-boned chickens[J]. Poultry Science, 2014, 93(1):54-62.

DOI PMID

[55]
KHAN K, AHMAD N, TAHIR M, et al. Alleviation of negative effect of heat stress through supplementations of cinnamon (Cinnamomum zeylanicum) and turmeric (Curcuma longa L.) powders in diets of broiler chickens[J]. Animal Biotechnology, 2023, 34(9):4457-4465.

DOI

[56]
ZHAO F, WANG X C, LI Y, et al. Effects of dietary supplementation with epigallocatechin gallate on meat quality and muscle antioxidant capacity of broilers subjected to acute heat stress[J]. Animals, 2021, 11(11):3296.

DOI

[57]
WAN X L, AHMAD H, ZHANG L L, et al. Dietary enzymatically treated Artemisia annua L. improves meat quality,antioxidant capacity and energy status of breast muscle in heat-stressed broilers[J]. Journal of the Science of Food and Agriculture, 2018, 98(10):3715-3721.

DOI

[58]
ZHANG C, ZHAO X H, WANG L, et al. Resveratrol beneficially affects meat quality of heat-stressed broilers which is associated with changes in muscle antioxidant status[J]. Animal Science Journal, 2017, 88(10):1569-1574.

DOI PMID

[59]
CHEN S, LIU H J, ZHANG J Q, et al. Dietary rutin improves breast meat quality in heat-stressed broilers and protects mitochondria from oxidative attack via the AMPK/PINK1-Parkin pathway[J]. Journal of the Science of Food and Agriculture, 2023, 103(5):2367-2377.

DOI

[60]
AKBARIAN A, MICHIELS J, GOLIAN A, et al. Gene expression of heat shock protein 70 and antioxidant enzymes,oxidative status,and meat oxidative stability of cyclically heat-challenged finishing broilers fed Origanum compactum and Curcuma xanthorrhiza essential oils[J]. Poultry Science, 2014, 93(8):1930-1941.

DOI

[61]
ZHAO J S, DENG W, LIU H W. Effects of chlorogenic acid-enriched extract from Eucommia ulmoides leaf on performance,meat quality,oxidative stability,and fatty acid profile of meat in heat-stressed broilers[J]. Poultry Science, 2019, 98(7):3040-3049.

DOI

[62]
赵云飞, 金太花, 魏明吉, 等. 热应激影响家禽肠道健康的研究进展[J]. 中国家禽, 2024, 46(12):116-123.

ZHAO Y F, JIN T H, WEI M J, et al. Research progress on effects of heat stress on intestinal health in poultry[J]. China Poultry, 2024, 46(12):116-123. (in Chinese)

[63]
SONG J, LEI X, LUO J X, et al. The effect of epigallocatechin-3-gallate on small intestinal morphology,antioxidant capacity and anti-inflammatory effect in heat-stressed broilers[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(4):1030-1038.

DOI

[64]
LIU L L, GONG X Y, ZHANG X Y, et al. Resveratrol alleviates heat-stress-induced impairment of the jejunal mucosa through TLR4/MAPK signaling pathway in black-boned chicken[J]. Poultry Science, 2024, 103(1):103242.

DOI

[65]
LIU L L, FU C X, YAN M L, et al. Resveratrol modulates intestinal morphology and HSP70/90,NF-κB and EGF expression in the jejunal mucosa of black-boned chickens on exposure to circular heat stress[J]. Food & Function, 2016, 7(3):1329-1338.

[66]
ELBAZ A M, ASHMAWY E S, SALAMA A A, et al. Effects of garlic and lemon essential oils on performance,digestibility,plasma metabolite,and intestinal health in broilers under environmental heat stress[J]. BMC Veterinary Research, 2022, 18(1):430.

DOI

[67]
YANG T, LIU B F, WANG Y J, et al. Ellagic acid improves antioxidant capacity and intestinal barrier function of heat-stressed broilers via regulating gut microbiota[J]. Animals, 2022, 12(9):1180.

DOI

[68]
DINI I, GRUMETTO L. Recent advances in natural polyphenol research[J]. Molecules, 2022, 27(24):8777.

DOI

[69]
ZHANG C, ZHAO X H, YANG L, et al. Resveratrol alleviates heat stress-induced impairment of intestinal morphology,microflora,and barrier integrity in broilers[J]. Poultry Science, 2017, 96(12):4325-4332.

DOI

Outlines

/