RESEARCH PAPER

Effects of Coconut Oil on Lipopolysaccharide-Induced Hepatic Injury and Ferroptosis in Piglets

  • WANG Ding ,
  • HE Wensheng ,
  • ZHANG Xiaojuan ,
  • CHENG Jiamin ,
  • LIAO Aiguo ,
  • LIU Yulan ,
  • WANG Dan , *
Expand
  • Hubei Key Laboratory of Animal Nutrition and Feed Science, Wuhan Polytechnic University, Wuhan 430023, China
* associate professor, E-mail:

Received date: 2025-07-16

  Online published: 2026-02-12

Abstract

This experiment aimed to investigate the effects of dietary coconut oil (COC) replacing soybean oil on lipopolysaccharide (LPS)-induced liver injury and ferroptosis in piglets. A 2×2 factorial design was used, with the two factors being dietary treatment (3% soybean oil or 3% COC) and LPS treatment (intraperitoneal injection of LPS or saline). Twenty-four 28-day-old “Duroc×Landrace×Yorkshire” weaned piglets were randomly assigned to 4 groups with 6 replicates per group, and 1 pig per replicate. The specific treatments for each group were as follows: 1) control group (CON group), 3.0% soybean oil+intraperitoneal injection of saline; 2) COC group, 3.0% COC+intraperitoneal injection of saline; 3) LPS group, 3.0% soybean oil+intraperitoneal injection of LPS; 4) COC+LPS group, 3.0% COC+intraperitoneal injection of LPS. On day 28 of the trial, piglets received an intraperitoneal injection of LPS (100 μg/kg BW) or an equivalent volume of saline, and all piglets were slaughtered for sample collection 4 hours post-injection. The results showed as follows: 1) dietary supplementation with COC alleviated LPS-induced histopathological damage in the liver, manifested by reduced hepatocyte karyolysis, nuclear pyknosis, and inflammatory cell infiltration; 2) it significantly mitigated the LPS-induced increase in serum aspartate aminotransferase (AST) activity and the AST/alanine aminotransferase (ALT) ratio (P<0.05); 3) furthermore, it significantly suppressed the LPS-induced upregulation of the mRNA relative expression levels of the inflammatory cytokine genes interleukin-6 (IL-6) and interleukin-1β (IL-1β) in the liver (P<0.05); 4) it did not affect hepatic malondialdehyde (MDA) concentration, total antioxidant capacity (T-AOC), and glutathione peroxidase (GSH-Px) activity, but showed a trend toward decreasing superoxide dismutase (SOD) activity (P=0.054); 5) it significantly inhibited the LPS-induced increase in the mRNA relative expression level of long-chain acyl-CoA synthetase 4 (ACSL4) in the liver (P<0.05), and significantly alleviated the LPS-induced decrease in the protein relative expression levels of solute carrier family 7 member 11 (SLC7A11) and glutathione peroxidase 4 (GPX4) in the liver (P<0.05). These results indicate that dietary supplementation with COC can alleviate LPS-induced hepatic inflammation and injury in piglets, and inhibit the activation of the ferroptosis signaling pathway.

Cite this article

WANG Ding , HE Wensheng , ZHANG Xiaojuan , CHENG Jiamin , LIAO Aiguo , LIU Yulan , WANG Dan . Effects of Coconut Oil on Lipopolysaccharide-Induced Hepatic Injury and Ferroptosis in Piglets[J]. Chinese Journal of Animal Nutrition, 2026 , 38(2) : 994 -1003 . DOI: 10.12418/CJAN2026.079

肝脏作为机体的核心代谢器官,通过生物转化作用清除毒素、净化血液并代谢各组织的药物残留,维持内环境稳态[1]。然而,病原体感染、毒素和应激等许多因素会引发仔猪肝脏炎症、坏死和功能障碍,并最终影响仔猪的健康。脂多糖(LPS)是存在于革兰氏阴性细菌中的一种强效内毒素,会诱导炎症细胞因子的过量释放导致肝脏发生炎症和损伤[2]。细胞死亡可引发肝脏损伤,其中铁死亡作为一种铁依赖的脂质过氧化性细胞死亡方式,通过加剧肝细胞氧化损伤在肝损伤病理过程中发挥关键作用[3]
铁死亡是由Dixon等[4]于2012年首次提出的一种铁依赖性的新型细胞死亡方式。与其他类型的死亡方式明显不同,铁死亡是一种主要依赖于脂质过氧化反应诱发的调节性的细胞死亡方式,并且其发生过程与细胞内富集的铁元素紧密相关[5]。铁作为体内一种必需的微量元素,对于维持机体正常的生理活动起着至关重要的作用,而肝脏是调节机体铁稳态最重要的器官[6]。研究发现,铁死亡抑制剂(Fer-1)能显著抑制乙醇诱导的小鼠肝脏脂代谢的标志物前列腺素内过氧化物合酶2(Ptgs2)mRNA表达的升高,从而缓解乙醇诱导的肝脏组织损伤[7]。以上结果表明,抑制铁死亡可能是缓解肝脏损伤的重要调控途径。
椰子油是从椰子肉中提取的食用油,富含中链脂肪酸,主要包括辛酸、癸酸和月桂酸等,其中月桂酸是椰子油中的主要脂肪酸,占总脂肪酸含量的45%~53%[8]。研究发现,椰子油中的月桂酸及其他中链脂肪酸,具有抗病毒、抗真菌和抗菌特性[9]。近年来,椰子油由于其对革兰氏阳性细菌具有抑制作用,已广泛应用于畜禽养殖中。此外,椰子油中含有多酚类化合物、维生素E等抗氧化物质,能够清除羟基自由基,增强细胞内超氧化物歧化酶(SOD)和谷胱甘肽还原酶(GR)的活性,从而提高机体的抗氧化能力[10]。Nair等[11]研究发现,椰子油可缓解环磷酰胺诱导的小鼠全身炎症,并有效抑制小鼠肝脏中SOD活性和谷胱甘肽(GSH)浓度的下降。然而,关于椰子油对仔猪肝脏损伤的缓解作用的研究相对较少,调控机制也不明确。因此,本研究以LPS诱导的仔猪肝脏损伤为模型,探讨饲粮中添加椰子油对仔猪肝脏形态、炎症反应、抗氧化能力以及铁死亡信号通路的影响,以期为椰子油在仔猪饲粮中的应用提供重要的理论依据,也为人类肝脏疾病的治疗提供新的见解。

1 材料与方法

1.1 试验设计

动物试验方案已获得武汉轻工大学动物福利和使用伦理委员会批准(No.WPU2023080901)。采用2×2双因子试验设计,主因子包括饲粮处理(3%大豆油或3%椰子油)和LPS处理(腹腔注射LPS或生理盐水)。选取(28±1)日龄的体重为(7.77±0.03) kg的“杜×长×大”断奶仔猪24头,随机分为4个组,每组6个重复,每个重复1头猪。各组具体处理如下:1)对照组(CON组),3.0%大豆油+腹腔注射生理盐水;2)COC组,3.0%椰子油+腹腔注射生理盐水;3)LPS组,3.0%大豆油+腹腔注射LPS;4)COC+LPS组,3.0%椰子油+腹腔注射LPS。试验周期为28 d。在试验第28天,按照组别对应腹腔注射100 μg/kg BW的LPS或等量的生理盐水。试验猪在注射4 h后采血,然后实施安乐死并屠宰,采集肝脏组织待测。试验饲粮参考NRC(2012)的营养标准配制,其组成及营养水平见表1

1.2 检测指标

1.2.1 肝脏形态

取新鲜的肝脏组织,在4%多聚甲醛中浸泡24 h以上,通过一系列乙醇溶液(70%、80%、95%、100%)对肝脏组织进行脱水,再用石蜡包埋,切片成5 μm薄片。将制备的切片用苏木精-伊红(HE)染色,并在光学显微镜下进行观察。

1.2.2 血清肝功能指标

采集猪前腔静脉血,将血液置促凝管中室温静置30~60 min,经4 ℃低温离心后分离上层血清,分装后于-80 ℃保存,用于后续生化分析。血清4 ℃解冻后,采用全自动生化分析仪(日立7100,日本)测定血清中天冬氨酸转氨酶(AST)、丙氨酸转氨酶(ALT)和碱性磷酸酶(ALP)的活性。
表1 试验饲粮组成及营养水平(饲喂基础)

Table 1 Composition and nutrient levels of experimental diets (as-fed basis) %

项目
Items
饲粮Diets
大豆油
Soybean oil
椰子油
Coconut oil
原料Ingredients
玉米Corn 37.75 37.75
豆粕Soybean meal (43% CP) 19.12 19.12
碎米Broken rice 14.71 14.71
膨化大豆Extruded soybean 6.43 6.43
膨化玉米Extruded corn 9.80 9.80
大豆油Soybean oil 3.00
椰子油Coconut oil 3.00
预混料Premix1) 0.46 0.46
DL-蛋氨酸DL-Met 0.12 0.12
L-赖氨酸L-Lys 0.36 0.36
食盐NaCl 0.47 0.47
磷酸氢钙CaHPO4 1.64 1.64
石粉Limestone 0.61 0.61
酸化剂Acidifier 0.19 0.19
发酵豆粕
Fermented soybean meal
2.22 2.22
鱼粉Fish meal 1.89 1.89
乳清粉Whey powder 1.23 1.23
合计Total 100.00 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 14.31 14.27
粗蛋白质CP 19.00 19.14
赖氨酸Lys 1.28 1.28
蛋氨酸+胱氨酸Met+Cys 0.75 0.75
苏氨酸Thr 0.82 0.82
色氨酸Trp 0.24 0.24
钙Ca 0.75 0.74
总磷TP 0.62 0.65
标准全肠道可消化磷STTDP 0.36 0.36

1)预混料为每千克饲粮提供 Premix provided the following per kg of diets:VA 5 512 IU,VD3 2 200 IU,VE 30 IU,VK 4 mg,VB2 5.22 mg,VB3 26 mg,VB5 20 mg,VB12 0.01 mg,叶酸 folic acid 0.39 mg,生物素 biotin 0.12 mg,Fe (FeSO4·7H2O) 75 mg,Mn (MnSO4·H2O) 40 mg,Zn (ZnSO4·7H2O) 75 mg,Cu (CuSO4·5H2O) 100 mg,I [Ca(IO3)2] 0.3 mg,Se (Na2SeO3·5H2O) 0.3 mg。

2)消化能、氨基酸和标准全肠道可消化磷为参考NRC(2012)所得计算值,粗蛋白质(GB/T 6432—2018)、钙(GB/T 6436—2018)和总磷(GB/T 6437—2018)则为参考相应国标方法所得实测值。DE, amino acids and STTDP were calculated values based on the NRC(2012), whereas CP (GB/T 6432—2018), Ca (GB/T 6436—2018) and TP (GB/T 6437—2018) were measured values obtained by referencing the corresponding national standard methods.

1.2.3 肝脏抗氧化指标

称取一定量的肝脏组织,按照重量(g)∶体积(mL)=1∶9的比例加入9倍体积生理盐水,剪碎组织,冰水浴制备匀浆液,3 000×g离心10 min,取上清即10%匀浆上清液待测。肝脏组织中总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性以及丙二醛(MDA)、总蛋白(TP)浓度使用南京建成生物工程研究所提供的试剂盒按照说明书步骤进行测定。

1.2.4 Western Blot

使用含有1 mmol/L蛋白酶抑制剂苯甲基磺酰氟(PMSF)的裂解缓冲液提取肝脏总蛋白,采用BCA蛋白测定试剂盒(#P0011,上海碧云天生物技术有限公司)测定总蛋白浓度。首先,将肝脏总蛋白样品使用10%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)进行分离,转移至聚偏二氟乙烯膜(PVDF膜)上;然后,用5%脱脂牛奶封闭膜后,使用抗β-肌动蛋白(β-actin)、谷胱甘肽过氧化物酶4(GPX4)、转铁蛋白受体1(TFR1)、铁转运蛋白1(FPN1)、溶质载体家族7成员11(SLC7A11)和溶质载体家族3成员2(SLC3A2)的抗体在4 ℃下孵育过夜;接着,使用二抗在室温下孵育2 h;最后,使用Clarity Max Western ECL底物(#1705062,Bio-Rad)对目的蛋白进行可视化,并使用ImageJ软件分析目的蛋白条带强度。

1.2.5 实时荧光定量PCR

采用RNAiso Plus试剂(#9108,TaKaRa)提取肝脏总RNA,使用NanoDrop 2000分光光度计测定RNA浓度,并通过1%琼脂糖凝胶电泳检查RNA质量。使用PrimeScriptTM RT reagent Kit with gDNA Eraser反转录试剂盒将RNA反转录为cDNA后,使用CFX96实时PCR系统进行实时定量PCR。表2列出了炎性细胞因子和铁死亡信号通路相关基因的引物序列。实时荧光定量PCR数据采用2-ΔΔCt方法进行分析,以β-actin作为内参基因。
表2 实时荧光定量PCR引物序列

Table 2 Primer sequences for RT-qPCR

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
产物大小
Product size/bp
β-肌动蛋白 F:TGCGGGACATCAAGGAGAAG
XM_003124280.5

216
β-actin R:AGTTGAAGGTGGTCTCGTGG
肿瘤坏死因子-α F:TCCAATGGCAGAGTGGGTATG
NM_214022.1

67
TNF-α R:AGCTGGTTGTCTTTCAGCTTCAC
白细胞介素-1β F:GCTAACTACGGTGACAACAATAATG
NM_214055.1

186
IL-1β R:CTTCTCCACTGCCACGATGA
白细胞介素-6 F:AAGGTGATGCCACCTCAGAC
JQ839263.1

151
IL-6 R:TCTGCCAGTACCTCCTTGCT
谷胱甘肽过氧化物酶4 F:CTGTTCCGCCTGCTGAA
NM_214407.1

218
GPX4 R:ACCTCCGTCTTGCCTCAT
溶质载体家族7成员11 F:GCCTTGTCCTATGCTGAGTTG
XM_021101587.1

178
SLC7A11 R:GTTCCAGAATGTAGCGTCCAA
溶质载体家族3成员2 F:GAGACCTAGCGAGCCTGAAG
XM_003353809.4

146
SLC3A2 R:CTTAGAACCGAAAGCGGGGT
转铁蛋白受体1 F:CGAAGTGGCTGGTCATCT
NM_214001.1

230
TFR1 R:TGTCTCTTGTCTCTACATTCCT
转铁蛋白 F:TGAGCTTGGATGGAGGCTAC
NM_001244653.1

126
TF R:CCACAGCCAAATACCCTTTCT
铁调节蛋白2 F:CGGTATGCTCACTTATCTCATCC
NM_001167781.1

154
IREB2 R:CTTACAGGTCTCTTCCACAACAC
铁转运蛋白1 F:GGTTCTTACTTCCTGCTATATC
XM_003483701.4

167
FPN1 R:ACTGGTCAATCCTTCGTATT
酰基辅酶A合成酶长链家族成员4 F:CTCCCTTCCGCCAGCTTC
NM_001038694.1

81
ACSL4 R:CGTGCTTTCAATCAGAGGCG
溶血磷脂酰胆碱酰基转移酶3 F:GGGCCCCAGTTCTCAATGAA
XM_003355593.5

92
LPCAT3 R:GCAGGTATGGTGCTGTTTGG

1.3 数据统计分析

试验数据采用SPSS 20.0统计软件进行双因素方差分析,模型主效应包括饲粮效应、LPS效应以及两者的互作效应,以P≤0.05表示具有显著性影响,0.05<P≤0.10表示具有显著性影响趋势。当主效应或互作效应具有显著影响时,采用Duncan氏法进行组间多重比较。统计结果用平均值和均值标准误表示。

2 结果

2.1 椰子油对LPS刺激仔猪肝脏形态和血清肝功能指标的影响

图1所示,LPS刺激导致仔猪肝脏中肝细胞核溶解、核固缩和炎症细胞浸润,饲粮中添加椰子油则缓解了LPS刺激导致的仔猪肝脏形态损伤。
图1 椰子油对LPS刺激仔猪肝脏形态的影响(HE染色,放大倍数:400倍,标尺:50 μm)

肝脏的病理变化包括肝细胞核溶解(a)、核固缩(b)和炎症细胞浸润(c)。

Fig.1 Effects of coconut oil on hepatic morphology of LPS-challenged piglets (HE staining, magnification: 400×, scale bar: 50 μm)

The hepatic pathological changes included hepatocyte karyolysis (a), nuclear pyknosis (b) and inflammatory cell infiltration (c).

表3可知,LPS刺激显著提高了仔猪血清中AST活性以及AST/ALT比值(P<0.05);饲粮中添加椰子油与LPS刺激的互作效应对仔猪血清中AST活性和AST/ALT比值有显著影响(P<0.05),即饲粮中添加椰子油显著缓解了LPS刺激导致的血清中AST活性和AST/ALT比值的升高(P<0.05);饲粮中添加椰子油与LPS刺激均未对仔猪血清中ALT和ALP活性产生显著影响(P>0.05)。
表3 椰子油对LPS刺激仔猪血清肝功能指标的影响

Table 3 Effects of coconut oil on serum hepatic function indices of LPS-challenged piglets

项目
Items
生理盐水Saline 脂多糖LPS 均值
标准误
SEM
PP-value
大豆油
Soybean
oil
椰子油
Coconut
oil
大豆油
Soybean
oil
椰子油
Coconut
oil
饲粮
Diet
脂多糖
LPS
互作
Interaction
天冬氨酸转移酶AST/(U/L) 78.0c 94.6bc 163.0a 112.4b 8.28 0.097 <0.001 0.003
丙氨酸转移酶ALT/(U/L) 41.0 38.8 37.3 35.0 1.00 0.254 0.066 0.958
天冬氨酸转移酶/丙氨酸转移酶
AST/ALT
1.89c 2.48bc 4.40a 3.10b 0.236 0.192 <0.001 0.002
碱性磷酸酶ALP/(U/L) 240 241 260 281 15.2 0.729 0.357 0.753

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 椰子油对LPS刺激仔猪肝脏中炎性细胞因子基因表达的影响

表4可知,LPS刺激显著提高了仔猪肝脏中TNF-αIL-1βIL-6的mRNA相对表达量(P<0.05);饲粮中添加椰子油显著降低了仔猪肝脏中IL-6和IL-1β的mRNA相对表达量(P<0.05);饲粮中添加椰子油与LPS刺激的互作效应对仔猪肝脏中IL-6和IL-1β的mRNA相对表达量有显著影响(P<0.05),即饲粮中添加椰子油显著缓解了LPS刺激导致的仔猪肝脏中IL-6和IL-1β mRNA相对表达量的升高(P<0.05)。
表4 椰子油对LPS刺激仔猪肝脏中炎性细胞因子基因表达的影响

Table 4 Effects of coconut oil on expression of hepatic inflammatory cytokine genes of LPS-challenged piglets

项目
Items
生理盐水Saline 脂多糖LPS 均值
标准误
SEM
PP-value
大豆油
Soybean
oil
椰子油
Coconut
oil
大豆油
Soybean
oil
椰子油
Coconut
oil
饲粮
Diet
脂多糖
LPS
互作
Interaction
肿瘤坏死因子-α TNF-α 1.09b 1.48b 3.18a 3.28a 0.261 0.476 <0.001 0.667
白细胞介素-6 IL-6 1.08c 1.54c 52.97a 21.47b 4.547 <0.001 <0.001 <0.001
白细胞介素-1β IL-1β 1.09b 1.95b 262.99a 83.23b 25.128 0.003 <0.001 0.003

2.3 椰子油对LPS刺激仔猪肝脏抗氧化指标的影响

表5可知,LPS刺激显著降低了仔猪肝脏中MDA浓度和SOD活性(P<0.05);饲粮中添加椰子油有降低仔猪肝脏中SOD活性的趋势(P=0.054);饲粮中添加椰子油与LPS刺激的互作效应对仔猪肝脏中MDA浓度、GSH-Px和SOD活性及T-AOC均没有显著影响(P>0.05)。
表5 椰子油对LPS刺激仔猪肝脏抗氧化指标的影响

Table 5 Effects of coconut oil on hepatic antioxidant indices of LPS-challenged piglets

项目
Items
生理盐水Saline 脂多糖LPS 均值
标准误
SEM
PP-value
大豆油
Soybean
oil
椰子油
Coconut
oil
大豆油
Soybean
oil
椰子油
Coconut
oil
饲粮
Diet
脂多糖
LPS
互作
Interaction
丙二醛MDA/(nmol/mg prot) 2.74a 2.19ab 1.62b 1.46b 0.192 0.319 0.014 0.574
超氧化物歧化酶SOD/(U/mg prot) 207a 203a 184ab 156b 6.5 0.054 <0.001 0.121
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
99.1 94.7 97.9 85.1 2.97 0.126 0.326 0.446
总抗氧化能力T-AOC/(U/mg prot) 0.45 0.52 0.46 0.43 0.022 0.617 0.350 0.285

2.4 椰子油对LPS刺激仔猪肝脏中铁死亡信号通路相关基因表达的影响

表6可知,LPS刺激显著降低了仔猪肝脏中GPX4、SLC7A11、FPN1、TFR1、TFIREB2和LPCAT3的mRNA相对表达量(P<0.05),且显著升高了肝脏中ACSL4的mRNA相对表达量(P<0.05);饲粮中添加椰子油显著降低了仔猪肝脏中ACSL4的mRNA相对表达量(P<0.05),且有提高肝脏中GPX4 mRNA相对表达量的趋势(P=0.066);饲粮中添加椰子油与LPS刺激的互作效应对仔猪肝脏中ACSL4的mRNA相对表达量有显著影响(P<0.05),即饲粮中添加椰子油显著缓解了LPS刺激导致的仔猪肝脏中ACSL4 mRNA相对表达量的升高(P<0.05);饲粮中添加椰子油和LPS刺激对仔猪肝脏中SLC3A2的mRNA相对表达量均没有产生显著影响(P>0.05)。
表6 椰子油对LPS刺激仔猪肝脏中铁死亡信号通路相关基因表达的影响

Table 6 Effects of coconut oil on expression of hepatic ferroptosis signaling pathway related genes of LPS-challenged piglets

项目
Items
生理盐水Saline 脂多糖LPS 均值
标准误
SEM
PP-value
大豆油
Soybean
oil
椰子油
Coconut
oil
大豆油
Soybean
oil
椰子油
Coconut
oil
饲粮
Diet
脂多糖
LPS
互作
Interaction
谷胱甘肽过氧化物酶4 GPX4 1.02a 1.09a 0.30b 0.50b 0.077 0.066 <0.001 0.357
溶质载体家族7成员11 SLC7A11 0.93ab 1.08a 0.32c 0.52bc 0.099 0.266 0.001 0.864
溶质载体家族3成员2 SLC3A2 0.91 1.27 1.29 1.88 0.161 0.139 0.128 0.712
铁转运蛋白1 FPN1 1.09a 1.17a 0.14b 0.15b 0.123 0.747 <0.001 0.814
转铁蛋白受体1 TFR1 1.08a 1.01a 0.34b 0.25b 0.111 0.612 <0.001 0.961
转铁蛋白TF 1.04a 1.22a 0.40b 0.42b 0.094 0.378 <0.001 0.515
酰基辅酶A合成酶长链家族成员4
ACSL4
1.26b 1.32b 3.08a 0.88b 0.224 0.002 0.038 0.002
铁调节蛋白2 IREB2 1.05a 0.87a 0.41b 0.35b 0.074 0.153 <0.001 0.457
溶血磷脂酰胆碱酰基转移酶3 LPCAT3 1.00a 0.98a 0.37b 0.27b 0.092 0.632 <0.001 0.749

2.5 椰子油对LPS刺激仔猪肝脏中铁死亡信号通路相关蛋白表达的影响

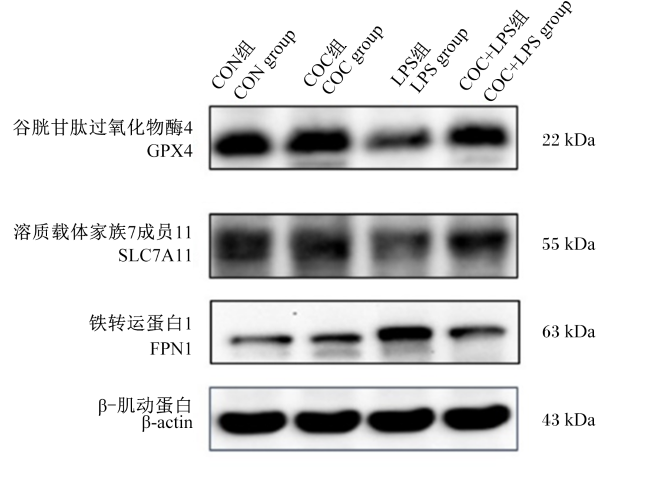
图2为肝脏中铁死亡信号通路相关蛋白GPX4、SLC7A11和FPN1的Western Blot结果。由表7可知,LPS刺激显著降低了仔猪肝脏中GPX4和SLC7A11的蛋白相对表达量(P<0.05);饲粮中添加椰子油显著提高了仔猪肝脏中GPX4、FPN1和SLC7A11的蛋白相对表达量(P<0.05);饲粮中添加椰子油与LPS刺激的互作效应对仔猪肝脏中GPX4和SLC7A11的蛋白相对表达量有显著影响(P<0.05),对FPN1的蛋白相对表达量有产生显著影响的趋势(P=0.067),即饲粮中添加椰子油显著缓解了LPS刺激导致的仔猪肝脏中GPX4和SLC7A11蛋白相对表达量的降低(P<0.05)。
图2 GPX4、SLC7A11和FPN1的代表性蛋白条带

Fig.2 Representative protein bands of GPX4, SLC7A11 and FPN1

表7 椰子油对LPS刺激仔猪肝脏铁死亡信号通路相关蛋白表达的影响

Table 7 Effects of coconut oil on expression of hepatic ferroptosis signaling pathway related proteins of LPS-challenged piglets

项目
Items
生理盐水Saline 脂多糖LPS 均值
标准误
SEM
PP-value
大豆油
Soybean
oil
椰子油
Coconut
oil
大豆油
Soybean
oil
椰子油
Coconut
oil
饲粮
Diet
脂多糖
LPS
互作
Interaction
谷胱甘肽过氧化物酶4 GPX4 0.35a 0.37a 0.21b 0.36a 0.016 <0.001 0.001 0.005
铁转运蛋白1 FPN1 0.23b 0.31a 0.20b 0.38a 0.019 <0.001 0.352 0.067
溶质载体家族7成员11 SLC7A11 0.63a 0.65a 0.44b 0.66a 0.023 0.001 0.005 0.004

3 讨论

肝脏作为动物代谢与解毒中枢,参与蛋白质、碳水化合物和脂肪的代谢调节及机体解毒过程。当LPS侵入机体时,通过激活肝脏内Toll样受体4(TLR4),产生大量炎性细胞因子,引起发热及炎症反应,因此腹腔注射LPS可模拟仔猪细菌感染所致肝脏损伤的病理过程[12]。本试验发现,采用椰子油替代饲粮中的大豆油可缓解LPS诱导的仔猪肝细胞核溶解、核固缩和炎性细胞浸润。核溶解标志着不可逆的细胞坏死;核固缩常见于细胞凋亡/坏死早期;窦性充血反映微循环障碍与炎症渗出,提示椰子油可能抑制LPS诱导的肝细胞死亡,从而缓解肝脏损伤。ALT与AST是重要的肝功能指标。ALT主要存在于细胞质中,其活性升高主要反映肝细胞膜通透性增加;而AST主要分布于线粒体内,其活性升高则通常提示更严重的肝细胞损伤。此外,ALT/AST比值对于判断急性肝炎类型及评估肝脏损伤程度具有重要参考价值。本研究显示,椰子油可缓解LPS诱导的仔猪血清中ALT活性及ALT/AST比值的上升,并降低肝脏中炎性细胞因子基因IL-6和IL-1β的表达,证实其具抗炎与保护肝脏的作用。椰子油的主要成分为中链脂肪酸,占总脂肪酸含量的60%~70%,其中月桂酸占到45%~50%,其余为癸酸、辛酸等。与长链脂肪酸相比,中链脂肪酸在代谢和功能上具有本质差异。椰子油的抗炎和抗氧化应激作用可能与其主要成分月桂酸密切相关。研究表明,月桂酸及其代谢产物(如单月桂酸甘油酯)作为一种信号分子能直接抑制核因子-κB(NF-κB)炎症信号通路,达到抗炎的作用。NF-κB是细胞内的“炎症总开关”,控制促炎细胞因子基因如TNF-αIL-6和IL-1β的表达。此外,单月桂酸甘油酯能够插入细胞膜,破坏TLR4所需的特定膜微环境,从而阻止LPS与TLR4的有效结合,从源头上抑制炎症信号的触发[13]。在抗氧化方面,椰子油中饱和脂肪酸占主导,缺乏不饱和双键,分子结构稳定,不易发生脂质过氧化,当其替代多不饱和植物油被摄入时,可降低肝细胞膜中多不饱和脂肪酸的比例,减少自由基攻击的敏感靶点。研究表明,在四氯化碳(CCl4)诱导的肝脏损伤模型中,三氯甲基自由基(CCl3·)等自由基易引发脂质过氧化链式反应,导致细胞膜破裂和酶泄漏,而椰子油则能通过提高细胞膜脂质饱和度,有效抑制由三氯甲基自由基启动的脂质过氧化链式反应,从而减轻氧化应激导致的肝脏损伤[14]
氧化应激往往是由于机体氧化还原稳态失衡引起的,其通过诱发脂质过氧化、蛋白质变性及DNA损伤,直接导致肝细胞结构破坏与代谢功能障碍,是造成肝脏损伤的关键因素[13]。MDA是多不饱和脂肪酸在活性氧攻击下发生脂质过氧化的终产物,其浓度直接反映细胞膜的氧化损伤程度,与脂质过氧化强度呈正相关,是评估氧化应激的关键指标;GSH-Px是关键的抗氧化酶,它利用GSH将过氧化氢(H2O2)及脂质过氧化物还原为无害的醇和水,自身则被氧化,这一过程直接清除了活性氧,保护了含硫醇蛋白的活性,对于维持细胞氧化还原稳态至关重要;SOD是机体防御超氧自由基的核心抗氧化酶,能将其歧化为H2O2和氧气,当SOD活性较低时,将导致超氧自由基积累及H2O2生成增加,从而加剧由氧化应激介导的肝细胞DNA氧化损伤[15]。本试验中,LPS刺激显著降低了仔猪肝脏中MDA的浓度和SOD的活性,有可能是LPS刺激导致肝脏中铁死亡相关基因ACSL4的表达上调,其上调促进多不饱和脂肪酸酯化,减少游离脂肪酸作为MDA前体,从而导致脂质过氧化产物MDA浓度下降[16]。也有研究指出,在ACSL4的表达刚上调的短期窗口内,由于游离的多不饱和脂肪酸被快速消耗,以其为底物的过氧化反应(生成MDA)自然会减少[17],所以才会出现这种试验结果。同时,过度炎症导致自由基爆发性生成,耗尽抗氧化酶,导致SOD活性下降[18]。尽管椰子油对仔猪肝脏中MDA浓度和T-AOC等抗氧化指标没有产生显著影响,但显著上调了关键抗脂质过氧化酶GPX4蛋白的表达。这也提示椰子油可能通过间接调控抗氧化关键蛋白的表达缓解肝脏炎症。
铁死亡作为一种铁依赖性细胞死亡方式,以铁蓄积、活性氧过量及脂质过氧化为特征[4]。肝脏铁稳态失衡可诱发铁死亡。作为细胞铁输出的关键转运蛋白,FPN1通过介导铁离子向细胞外转运,从而调控细胞内不稳定铁池,在维持机体铁稳态中发挥核心作用。本试验中,饲粮中添加椰子油提高了LPS刺激仔猪肝脏中FPN1蛋白的表达,增强了铁转运和降低了细胞内亚铁离子的浓度,从而抑制脂质过氧化和铁死亡。System Xc-由SLC7A11和SLC3A2组成,以1∶1比例摄取胱氨酸释放谷氨酸,参与GSH合成和氧化还原平衡[19-20]。SLC7A11的降低抑制了细胞对胱氨酸的摄取,这使得进入细胞内的胱氨酸总量减少,进而导致其还原产物——半胱氨酸的生成量降低。半胱氨酸的匮乏使得GSH的合成受到抑制,从而导致细胞脂质过氧化的发生。本试验结果显示,饲粮中添加椰子油可缓解LPS诱导的仔猪GPX4和SLC7A11蛋白表达的降低,抑制铁死亡。Li等[21]报道,LPS诱导的小鼠肝脏损伤中铁死亡伴随脂质ROS升高。ACSL4是铁死亡关键驱动因子,激活多不饱和脂肪酸酯化,促进铁死亡[22]。本试验中,椰子油缓解LPS诱导的仔猪肝脏中ACSL4蛋白表达的升高,进一步证实其抑制铁死亡的作用。以上结果表明,LPS刺激能诱导仔猪肝脏炎症并激活肝脏铁死亡信号通路,而饲粮中添加椰子油能激活肝脏中的GPX4以及抑制由ASCL4导致的脂质过氧化,从而抑制铁死亡的发生。

4 结论

椰子油能通过上调GPX4和下调ASCL4的表达抑制肝细胞铁死亡,从而缓解LPS诱导的仔猪肝脏损伤和炎症反应。
[1]
ZHOU Y X, HU X F, ZHONG S W, et al. Effects of continuous LPS induction on oxidative stress and liver injury in weaned piglets[J]. Veterinary Sciences, 2022, 10(1):22.

DOI

[2]
HUTCHINS A P, TAKAHASHI Y, MIRANDA-SAAVEDRA D. Genomic analysis of LPS-stimulated myeloid cells identifies a common pro-inflammatory response but divergent IL-10 anti-inflammatory responses[J]. Scientific Reports, 2015(1),5:9100.

[3]
李运淇, 严文静, 王雯. 铁死亡与肝脏疾病[J]. 中南医学科学杂志, 2020, 48(6):660-663.

LI Y Q, YAN W J, WANG W. Ferroptosis and hepatic disease[J]. Medical Science Journal of Central South China, 2020, 48(6):660-663. (in Chinese)

[4]
DIXON S J, LEMBERG K M, LAMPRECHT M R, et al. Ferroptosis:an iron-dependent form of nonapoptotic cell death[J]. Cell, 2012, 149(5):1060-1072.

DOI

[5]
SUN Y T, CHEN P, ZHAI B T, et al. The emerging role of ferroptosis in inflammation[J]. Biomedicine & Pharmacotherapy, 2020,127:110108.

[6]
吴姜杰, 齐家龙, 宋正己. 肝细胞铁死亡在肝脏相关疾病的研究进展[J]. 肝脏, 2024, 29(1):117-122.

WU J J, QI J L, SONG Z J. Progress of hepatocyte iron death in liver-related diseases[J]. Chinese Hepatology, 2024, 29(1):117-122. (in Chinese)

[7]
ZHOU Z, YE T J, DECARO E, et al. Intestinal SIRT1 deficiency protects mice from ethanol-induced liver injury by mitigating ferroptosis[J]. The American Journal of Pathology, 2020, 190(1):82-92.

DOI

[8]
DAYRIT F M. The properties of lauric acid and their significance in coconut oil[J]. Journal of the American Oil Chemists’ Society, 2015, 92(1):1-15.

DOI

[9]
KABARA J J, SWIECZKOWSKI D M, CONLEY A J, et al. Fatty acids and derivatives as antimicrobial agents[J]. Antimicrobial Agents and Chemotherapy, 1972, 2(1):23-28.

DOI PMID

[10]
NEVIN K G, RAJAMOHAN T. Beneficial effects of virgin coconut oil on lipid parameters and in vitro LDL oxidation[J]. Clinical Biochemistry, 2004, 37(9):830-835.

DOI

[11]
NAIR S S, MANALIL J J, RAMAVARMA S K, et al. Virgin coconut oil supplementation ameliorates cyclophosphamide-induced systemic toxicity in mice[J]. Human & Experimental Toxicology, 2016, 35(2):205-212.

[12]
JANEWAY C A Jr, MEDZHITOV R. Innate immune recognition[J]. Annual Review of Immunology, 2002,20:197-216.

[13]
KHAN H U, AAMIR K, JUSUF P R, et al. Lauric acid ameliorates lipopolysaccharide (LPS)-induced liver inflammation by mediating TLR4/MyD88 pathway in Sprague Dawley (SD) rats[J]. Life Sciences, 2021,265:118750.

[14]
AHMAD B, KHAN W, HAQ T U, et al. Beneficial effects of coconut oil (Cocos nucifera) on hematobiochemicl and histopathological markers in CCl4-intoxicated rabbits[J]. Brazilian Journal of Biology, 2022,84:e252555.

[15]
ABKOWITZ J L, PERSIK M T, SHELTON G H, et al. Behavior of hematopoietic stem cells in a large animal[J]. Proceedings of the National Academy of Sciences of the United States of America, 1995, 92(6):2031-2035.

PMID

[16]
AL-RASHED F, THOMAS R, AL-ROUB A, et al. LPS induces GM-CSF production by breast cancer MDA-MB-231 cells via long-chain acyl-CoA synthetase 1[J]. Molecules, 2020, 25(20):4709.

DOI

[17]
URSINI F, MAIORINO M. Lipid peroxidation and ferroptosis:the role of GSH and GPx4[J]. Free Radical Biology and Medicine, 2020,152:175-185.

[18]
GULEC PEKER E G, KALTALIOGLU K. Cinnamaldehyde and eugenol protect against LPS-stimulated oxidative stress and inflammation in Raw 264.7 cells[J]. Journal of Food Biochemistry, 2021, 45(12):e13980.

[19]
STOCKWELL B R. Ferroptosis turns 10:emerging mechanisms,physiological functions,and therapeutic applications[J]. Cell, 2022, 185(14):2401-2421.

DOI

[20]
LIU J Y, XIA X J, HUANG P. XCT:a critical molecule that links cancer metabolism to redox signaling[J]. Molecular Therapy, 2020, 28(11):2358-2366.

DOI

[21]
LI N, WANG W, ZHOU H, et al. Ferritinophagy-mediated ferroptosis is involved in sepsis-induced cardiac injury[J]. Free Radical Biology and Medicine, 2020,160:303-318.

[22]
LI Y, FENG D C, WANG Z Y, et al. Ischemia-induced ACSL4 activation contributes to ferroptosis-mediated tissue injury in intestinal ischemia/reperfusion[J]. Cell Death & Differentiation, 2019, 26(11):2284-2299.

Outlines

/