REVIEW

Research Advances on Effects of Tryptophan on Canine Aggressive Behavior

  • SUN Ning , 1 ,
  • LI Biao 2 ,
  • TIAN Ye 2 ,
  • TAO Shifan , 3, *
Expand
  • 1 College of Police Dog Technology, Criminal Investigation Police University of China, Shenyang 110048, China
  • 2 College of Criminal Investigation and Counter-Terrorism, Criminal Investigation Police University of China, Shenyang 110048, China
  • 3 College of Medical Information Engineering, Shenyang Medical College, Shenyang 110034, China
*lecturer, E-mail:

Received date: 2025-08-14

  Online published: 2026-03-16

Abstract

5-hydroxytryptamine (5-HT), also known as serotonin, is a neurotransmitter closely related to aggression, tryptophan (Trp) is the only precursor for 5-HT synthesis, its cerebral bioavailability in brain is influenced by multiple factors, including the ratio of Trp to other large neutral amino acids, competitive metabolic shunting through Trp pathways and blood-brain barrier transport mechanisms. Dietary Trp supplementation can promote the synthesis of 5-HT in the central nervous system, helps alleviate anxiety and impulsive behaviors, thereby reduce the aggression propensity of canine. This article reviews the research advances on the role of Trp in regulating aggressive behavior in dogs and its potential mechanisms in mechanistic actions and across blood-brain barrier transport, in order to provide references for nutritional intervention in canine behavioral regulation and commercial canine diet formula design.

Cite this article

SUN Ning , LI Biao , TIAN Ye , TAO Shifan . Research Advances on Effects of Tryptophan on Canine Aggressive Behavior[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 1581 -1594 . DOI: 10.12418/CJAN2026.126

犬是人类驯化的唯一大型食肉动物,与人类共同生活已超过15 000年[1]。尽管犬与人类的关系亲密,但其攻击行为导致的咬伤甚至致死事件仍时有发生[2-4],这不仅威胁人类的安全,也是造成犬被遗弃或实施安乐死的主要原因之一[5-6]。在某些地区,犬攻击行为已成为一个不容忽视的公共安全问题。因此,深入研究犬攻击行为的发生机制,对保障人类的安全和改善动物福利都具有重要意义。
攻击行为是动物通过竞争获取资源、保障生存的一种适应性策略[7]。对犬而言,攻击行为同样是一种重要的适应性社会行为,它在领地防御、社会支配、资源保护、捕食乃至求偶与繁殖互动中都起着关键作用[8]。在驯化过程中减少了犬对人的攻击,然而,攻击行为作为一种防御与竞争机制,因其领地防御、建立等级和资源守护的天性而得以保留。尽管这是犬的正常社会行为,但在人类社会中,一旦过度防御或竞争,尤其是攻击人,便会成为最危险且不被接受的行为。犬攻击行为通常表现为直接的撕咬,以及咆哮、吠叫和龇牙等预备性威胁信号。典型的行为次序依次包括:警告阶段(表现为咆哮、龇牙、特定姿势)、行动阶段(撕咬)和停止阶段(伴随安抚信号)。
犬攻击行为并非单一表型,而是一个高度异质性的复杂行为谱系。根据动机与情境,通常可分为支配性攻击、恐惧性攻击、领地性攻击、占有性攻击等多种亚型[9]。不同攻击亚型不仅表现特征各异,其神经生物学基础也存在显著差异。攻击行为的神经生物学基础涉及一个核心环路,包括导水管周围灰质(periaqueductal gray matter,PAG)、下丘脑(hypothalamus,HT)以及杏仁核(amygdala,AMG)。具体而言,不同攻击行为亚型由不同的神经通路驱动:支配性攻击常与维护社会等级相关,主要由腹侧PAG接收来自外侧HT的信号驱动;而恐惧性攻击多源于防御性应激,主要由背侧PAG通过内侧HT接收来自AMG的输入信号介导[10]
目前,犬攻击行为的生物学机制尚未完全阐明,其发生受到遗传、认知、性别、激素水平及环境等多种因素的复杂调控[11-13]。研究证实,多种神经递质参与调节攻击行为[14]。在去甲肾上腺素、多巴胺、乙酰胆碱和γ-氨基丁酸等多种神经递质中,5-羟色胺(5-hydroxytryptamine,5-HT,又名血清素)的神经活动最为持续稳定[15],并被公认在多个物种的攻击性控制中发挥关键作用[16]。通常,高攻击性个体的5-HT及其代谢物5-羟基吲哚乙酸(5-hydroxyindoleacetic acid,5-HIAA)水平较低[16-19]
色氨酸(tryptophan,Trp)是神经递质5-HT合成的唯一前体物质[20],它可增强中枢5-HT合成及信号传导,进而发挥效应[21],并通过调控中枢5-HT系统来调节恐惧、焦虑及应激反应[22]。临床与动物试验表明,Trp营养干预能显著影响攻击行为。对人的研究表明,Trp缺乏会加剧攻击行为、愤怒和抑郁情绪[23];而饮食补充Trp对病态攻击患者具有治疗作用[24]和积极影响[25]。动物试验发现,高Trp饲粮能有效抑制大鼠的焦虑行为[26],降低银狐的恐惧感并增加探索行为[27],减少黑长尾猴的攻击性[28],缓解恒河猴的自残行为[29],并减少猪的攻击性和异常行为[30]。这些发现为犬攻击行为的营养干预提供了重要启示。目前已有一些研究开始关注Trp对犬攻击行为的影响,但该领域的研究仍相对匮乏。
当前,犬饲粮呈现出高蛋白质的趋势。饲粮中的蛋白质含量、Trp代谢与犬攻击行为的关系日益受到关注。由于Trp在大多数蛋白质中的相对含量较低[31],它需要与其他氨基酸竞争血脑屏障(blood-brain barrier,BBB)的转运通道。Trp在大脑中的生物利用度实际上取决于饲粮中蛋白质含量和氨基酸组成。这一特性提示,在特定情况下(如应激状态),饲粮中Trp含量可能对犬的行为和健康状态产生显著影响。因此,本文通过系统综述Trp调控犬攻击行为的研究进展,旨在深入阐明其内在作用机制,期望为开发犬行为导向的营养干预策略、研制保障公共安全的专用犬粮以及提升犬的福利提供参考。

1 Trp与Trp代谢

Trp是动物和人类的必需氨基酸,主要通过食物摄入。它广泛存在于肉类、乳制品、水果和种子等多种蛋白质类食物中[32]。Trp是蛋白质合成的关键原料,直接影响机体生长发育和健康状况。同时,它还是多种重要生物活性物质的前体,参与代谢调控[21],例如5-HT、犬尿氨酸(kynurenine,KYN)、褪黑素。食物中的Trp经小肠消化吸收后进入血液循环,主要与白蛋白结合,而仅有10%~20%以游离形式存在[33],并参与宿主的蛋白质合成过程。血浆Trp水平取决于食物摄入量与蛋白质合成消耗量之间的动态平衡[34]

1.1 Trp代谢途径

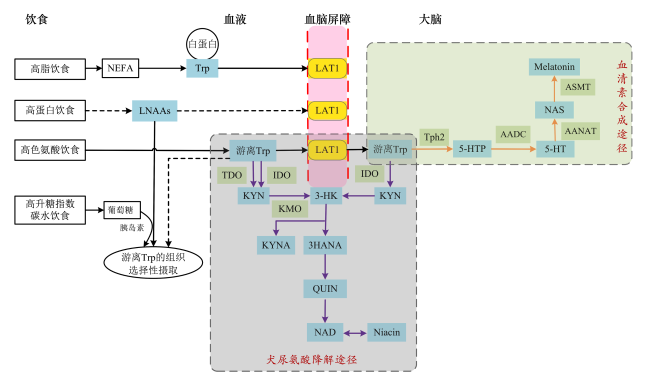
Trp主要通过2条路径进行转化(图1),大约1%的Trp通过5-HT合成途径代谢,超过90%的Trp则通过KYN途径降解[33,35]
图1 Trp摄入和代谢途径

NEFA:非酯化脂肪酸 non-esterified fatty acids;Trp:色氨酸 tryptophan;LAT1:大中性氨基酸转运蛋白 large neutral amino acid transporter;LNAAs:大分子中性氨基酸 large neutral amino acids;Tph2:色氨酸羟化酶2 tryptophan hydroxylase;5-HTP:5-羟色胺酸 5-hydroxytryptophan;AADC:芳香族L-氨基酸脱羧酶 aromatic L-amino acid decarboxylase;AANAT:芳烷胺N-乙酰转移酶 aralkylamine N-acetyltransfer;ASMT:N-乙酰血清素-O-甲基转移酶 acetylserotonin O-methyltransferase;NAS:N-乙酰血清素 N-acetyl-serotonin;Melatonnin:褪黑激素;IDO:吲哚胺2,3-双加氧酶 indoleamine 2,3-dioxygenase;TDO:色氨酸2,3-双加氧酶 tryptophan 2,3-dioxygenase;KMO:犬尿氨酸3-单加氧酶 kynurenine 3-monooxygenase;3-HK:3-羟基犬尿氨酸 3-hydroxykynurenine;KYN:犬尿氨酸 kynurenine;KYNA:犬尿酸 kynurenic acid;3HANA:3-羟基邻氨基苯甲酸 3-hydroxyanthranilic acid;QUIN:喹啉酸 quinolinic acid;NAD:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide;Niacin:烟酸。

黑色实线箭头表示增加脑Trp水平;黑色虚线箭头表示降低脑Trp水平。The black solid arrow indicated the increase in brain Trp level; the black dashed arrow indicated the decrease in brain Trp level.

Fig.1 Trp uptake and metabolic pathways[33,36]

1.1.1 Trp的KYN代谢途径

超过90%的Trp通过KYN途径代谢(其中90%发生在肝脏中)。该代谢途径由2种酶催化:吲哚胺2,3-双加氧酶(indoleamine 2,3-dioxygenase,IDO)广泛分布,其活性受γ-干扰素等免疫因子诱导;色氨酸2,3-双加氧酶(tryptophan 2,3-dioxygenase,TDO)具有肝脏特异性,其活性直接受Trp水平调节,并通过下丘脑-垂体-肾上腺轴响应刺激[37]
KYN可进一步代谢为2种具有神经活性的物质:犬尿酸(kynurenic acid,KYNA)为N-甲基-D-天冬氨酸(neuroprotective N-methyl D-aspartate,NMDA)受体拮抗剂,发挥神经保护作用;喹啉酸(quinolinic acid,QUIN)为NMDA受体激动剂,表现为神经毒性[38]。在抑郁症等脑功能疾病中,KYNA与QUIN的比值失衡受到关注[39]。由此可见,KYN途径的激活不仅限制了中枢5-HT的合成,还通过产生神经活性代谢产物参与脑功能调控。不过,其具体机制仍有待进一步阐明。

1.1.2 Trp的合成5-HT途径

大约1%的Trp参与5-HT合成途径。色氨酸羟化酶(tryptophan hydroxylase,TPH)是此途径的关键限速酶[21],它有2个基因:TPH1主要分布于肠嗜铬细胞(enterochromaffin cells,ECs),负责外周5-HT的合成;TPH2特异性表达于中枢神经系统(central nervous system,CNS),主导中枢5-HT的生成[40]。在CNS中,Trp的转化过程如下:Trp首先经TPH2催化生成5-羟色胺酸(5-hydroxytryptophan,5-HTP),再由芳香族L-氨基酸脱羧酶(aromatic L-amino acid decarboxylase,AADC)脱羧生成5-HT[41]。由于TPH2在生理条件下通常处于半饱和状态[40],因此提高中枢Trp水平可直接促进5-HT合成,使其达到上限水平[42]。换言之,增加Trp的生物利用度能有效促进5-HT的合成。最终,5-HT会经由单胺氧化酶和醛脱氢酶的催化,代谢为5-HIAA[43]

1.2 肠道菌群对Trp代谢的调控

目前,肠道菌群对行为的调控作用日益明确。其中,它对Trp和5-HT代谢的影响尤为突出。研究表明,肠道菌群组成的变化能够通过调节Trp代谢,进而影响肠-脑轴(gut-brain axis,GBA)功能[33]。Trp的多种代谢产物,如5-HT、KYN、色胺和吲哚类化合物,在肠道菌群与GBA的交互作用中具有重要的调控功能[44]。越来越多的证据显示,肠道菌群通过多种途径影响着肠道内Trp的可利用性[33],因此,肠道菌群被视为调节肠道Trp代谢的关键驱动力。
虽然大部分饮食中的Trp在小肠被吸收,仍有相当数量的Trp会进入大肠,并被其中的共生菌群降解[45]。肠道菌群通过直接和间接途径调控Trp和5-HT水平。间接调控主要通过犬尿氨酸途径实现。直接调控的证据则来自无菌动物试验:与普通小鼠相比,无菌小鼠肠道内的色胺水平较低,同时血液循环中的Trp水平较高[46]。色胺是一种结构类似于5-HT的单胺,可由共生菌产生的色氨酸脱羧酶(tryptophan decarboxylases,TrpDs)催化Trp脱羧生成。这一现象表明,肠道菌群参与了Trp的脱羧过程;当为无菌小鼠定植Trp代谢菌后,其循环Trp水平下降[46]。同时,脑内观察显示,小鼠海马区的5-HT水平及其周转率升高,并伴随焦虑样行为的减少[47]。这些结果证实了肠道菌群对行为表型和脑神经化学具有双重影响。此外,研究发现,至少10%的动物肠道中含有编码TrpDs的细菌[48]。特别是梭菌属(Clostridium)、瘤胃球菌属(Ruminococcus)、布劳特氏菌属(Blautia)和乳杆菌属(Lactobacillus)中的某些菌株,能够以TrpDs依赖的方式将Trp转化为色胺[48]。Trp还能通过色氨酸酶被肠道菌群代谢为吲哚及其衍生物[49]。这种酶广泛存在于大肠杆菌(Escherichia coli)、梭菌属和拟杆菌属(Bacteroides)中[33]
最新研究进一步证实,肠道菌群不仅调控Trp的利用,还通过多种途径调控5-HT的合成。在外周5-HT水平调节方面,肠道内源性的5-HT主要由ECs在响应多种刺激后释放[50]。研究表明,能够形成芽孢的小鼠和人类共生菌群,可以通过代谢物或细胞成分依赖的机制,促进结肠ECs合成5-HT[51]。共生菌群还能直接利用肠腔中的Trp来合成5-HT。已有报道指出,乳酸球菌属(Lactococcus)、乳杆菌属、链球菌属(Streptococcus)、大肠杆菌和克雷伯菌属(Klebsiella)等的菌种,可以通过表达Trp合成酶来产生5-HT[52]。在中枢5-HT合成调控方面,菌群代谢产物——短链脂肪酸可经血液循环发挥神经保护作用。其机制涉及提升脑内5-HT水平和修复BBB损伤[53]。而革兰氏阴性菌外膜的主要成分脂多糖等炎症刺激物,则可通过激活IDO来强化犬尿氨酸途径,从而降低小鼠前额叶皮质的5-HT水平[54]
由此可见,肠道菌群通过调控Trp代谢,在5-HT合成与降解途径的动态平衡中发挥关键作用[49]。鉴于Trp代谢直接或间接受肠道菌群的调控,靶向干预肠道菌群将为治疗GBA功能紊乱提供一个极具前景的新途径。

2 Trp跨BBB的转运机制

目前,普遍认为中枢Trp的生物利用度主要取决于其跨BBB转运的能力以及合成5-HT的效率[55]。这一过程主要受2种限速机制的调控。

2.1 Trp与大分子中性氨基酸(large neutral amino acids,LNAAs)的竞争机制

在BBB转运系统中,Trp需要与多种LNAAs竞争相同的转运载体[42],包括酪氨酸、苯丙氨酸、亮氨酸、异亮氨酸和缬氨酸等。饮食中含有的LNAAs与Trp竞争通过BBB的运输,从而限制Trp进入大脑[55]。因此,提高大脑中的Trp水平,可以通过提升Trp∶LNAAs比值(增加血浆Trp水平或降低血浆LNAAs水平)来实现。然而,大多数蛋白质食物中Trp含量相对较低,而其他LNAAs含量较高[56]。所以,高蛋白质饮食导致Trp∶LNAAs比值下降,这会阻碍Trp通过BBB进入CNS。该机制也揭示了为何单纯提高蛋白质摄入对犬攻击行为的影响并不一致[12,57-58]

2.2 游离Trp跨BBB的转运机制

在血液循环中,通常有80%~90%的Trp与血浆白蛋白结合,只有10%~20%以游离形式存在。需要注意的是,只有游离的Trp能够通过BBB[33,55]。Trp跨BBB转运途径有2种:一是游离Trp直接与BBB上的载体蛋白结合,然后被转运入脑;二是与白蛋白结合的Trp先发生解离,再与载体结合,这是因为Trp与BBB结合位点的亲和力高于其与白蛋白的亲和力[59]。因此,Trp的游离状态是调控中枢5-HT合成的关键因素[43]。Chaouloff[60]研究表明,游离Trp水平受到多种因素的动态调节:1)脂解速率。非酯化脂肪酸(non-esterified fatty acids,NEFA)可以置换出白蛋白结合的Trp,这意味着高脂饮食能释放出游离Trp,从而促进Trp的BBB转运[61];2)TDO活性。TDO是KYN途径的限速酶,其活性变化直接影响Trp水平[62];3)组织摄取。不同组织对氨基酸的摄取具有选择性。例如,肌肉组织优先摄取支链氨基酸(如亮氨酸、异亮氨酸)用于合成代谢;而脑组织主要摄取Trp、酪氨酸(多巴胺前体)等LNAAs。高碳水化合物饮食可通过升高血糖来刺激胰岛素分泌,进而促进肌肉对LNAAs的摄取[63],这间接提高了Trp∶LNAAs比值。因此,高血糖指数的碳水化合物饮食能增加Trp的可用性[64]
由此可见,饮食特征是影响脑内Trp生物利用度的主要因素。通过饮食干预可影响Trp代谢调控,进而调控犬的攻击行为。

3 5-HT与攻击行为

5-HT是一种重要的单胺类神经递质,它在哺乳动物中广泛参与多种生理过程,包括认知功能、情绪调节和行为控制[65]。5-HT分布于CNS和外周组织中。在CNS中,5-HT主要由脑干的中缝核神经元合成,并通过广泛的神经投射,分布到海马、杏仁核、下丘脑等多个关键脑区[66]。这种神经分布使5-HT能够精细调控多种神经功能,包括情绪反应、感知觉、奖惩机制、攻击行为、食欲、记忆及性行为。临床研究表明,5-HT系统功能紊乱与多种精神疾病的发生密切相关[67]。值得注意的是,CNS中的5-HT仅占全身总量的5%,其余95%主要由外周组织产生。其中,胃肠道上皮的ECs是最主要的合成部位,约占消化道5-HT的90%[68]。由于BBB的阻隔,外周的5-HT在正常情况下无法进入CNS[33],因此,中枢和外周的5-HT系统形成2个相对独立的代谢单元。中枢5-HT的合成完全依赖于血液循环中的Trp通过BBB转运入脑,然后在脑内完成合成过程[69]
大量跨物种研究证实,5-HT系统与攻击行为密切关联。在啮齿类、灵长类及人类研究中,攻击性和冲动行为普遍伴随着血清5-HT及其代谢物5-HIAA水平的降低[16-18]。相反,在猪和人的模型中发现,较高的外周5-HT水平往往与恐惧、焦虑等负面情绪状态相关[30,70]。在犬类研究中也得到了一致结论,无论是检测血清[71-72]、尿液[73]还是脑脊液[74],攻击性犬的5-HT水平均显著偏低。其中,支配性攻击犬的脑脊液5-HIAA水平降低尤为明显[74]

4 饲粮中添加Trp影响犬攻击行为的应用研究

目前,已有多项研究探讨了饲粮中添加Trp对犬问题行为(如攻击性、 多动或焦虑等)的影响,相关研究汇总见表1。这些研究主要采用高蛋白质与低蛋白质饲粮的对比试验设计。饲粮蛋白质水平是治疗犬行为障碍的关键因素,尤其对于攻击行为。Denapoli等[12]报告指出,对于表现出支配性攻击行为的犬,在高蛋白质饲粮中添加Trp,或者改为低蛋白质饲粮,可能有助于降低其攻击性;对于表现出领地性攻击行为的犬,在低蛋白质饲粮中添加Trp,可能有助于降低其攻击性。这些饲粮改变了Trp∶LNAAs比值,进而影响了Trp与LNAAs在BBB转运中的竞争关系;具体而言,高蛋白质饲粮会降低Trp∶LNAAs比值,从而阻碍Trp通过BBB;低蛋白质饲粮则可提高Trp∶LNAAs比值,促进Trp向脑部转移。
表1 饲粮中添加Trp对犬攻击行为的影响

Table 1 Effects of dietary Trp supplementation on aggressive behavior of canine

文献
References
试验设计
Experimental design
饲粮方案
Dietary regimen
检测指标
Measured parameters
结果
Results
[12] 33只犬随机分为3组:领地攻击
犬(n=11)、支配攻击犬(n=11)、
多动症犬(n=11);家庭环境,每组
随机饲喂1种饲粮(每周轮换);
犬>1岁
4种饲粮:1)蛋白质186 g/kg,
Trp 1.8 g/kg,Trp∶LNAAs=
0.044∶1;2)蛋白质188 g/kg,
Trp 3.0 g/kg,Trp∶LNAAs=
0.073∶1;3)蛋白质308 g/kg,
Trp 2.4 g/kg,Trp∶LNAAs=
0.035∶1;4)蛋白质315 g/kg,
Trp 3.7 g/kg,Trp∶LNAAs=0.054∶1
每日记录领地攻击性、支配攻击性、
兴奋性、恐惧性、多动性;在每个饲粮
喂养周期结束时,测定5项行为
指标的每周平均值以及5-HT和
Trp水平
在低蛋白质饲粮条件下,高Trp组犬的
领地攻击评分显著低于低Trp组;未
补充Trp的高蛋白质饲粮组,其支
配性攻击评分显著高于其他组
[58] 50只犬随机分为3组:领地攻击
犬(n=12)、支配攻击犬(n=12)、
多动症犬(n=12)、对照犬(n=14);
家庭环境,每组随机饲喂2周;
犬>1岁
3种饲粮:1)蛋白质180 g/kg,Trp
1.0 g/kg,Trp∶LNAAs=0.024∶1;
2)蛋白质250 g/kg,Trp 1.6 g/kg,
Trp∶LNAAs=0.024∶1;3)蛋白质
310 g/kg,Trp 1.6 g/kg,Trp∶
LNAAs=0.021∶1
每日记录领地攻击性、支配
攻击性、兴奋性、恐惧性
1)饲喂饲粮1、2的领地攻击性评分
显著低于饲粮3;2)饲喂饲粮1、2的
恐惧性评分低于饲粮3,支配
攻击性评分无变化;3)支配攻击犬、
多动症犬和对照犬的行为评分无变化
[75] 7只有攻击性的金毛猎犬
(家庭环境)
蛋白质占饮食总能量的15%~
18%(约20%肉类+
80%水煮饲粮)
未报告具体指标 3只犬行为持续改善,2只犬行为
恶化,2只犬失访
[36] 犬随机分为3组:对照组(n=66)、
Trp组(n=72)、第3组(n=69);
在开始饮食治疗前及治疗后至
少8周,对犬进行行为测试,包括开
放场地试验和分离焦虑测试,
并检测焦虑相关指标及
血浆Trp水平
3种饲粮:1)基础饲粮,Trp
5.7 g/kg;2)Trp含量2.6倍于基础
饲粮的试验饲粮;3)添加Trp、甜
菜粕、鲑鱼油、大豆卵磷脂和
绿茶提取物的复合饲粮
行为参数包括行走、站立、坐下、
躺下、高姿态、低姿态、摇尾、颤抖、
喘息以及接近新物体(0.5 m范围
内)以及犬接触新物体的潜伏期;
每只犬分别在测试开始、测试后
采集2次唾液样本,以测量皮质醇
浓度;干预8周后,采集犬血液以
评估血浆Trp水平
1)Trp组较对照组血浆Trp水平
显著升高了37.4%,Trp∶LNAAs
比值提高了31.2%,但犬主未报告特定
饮食引起的行为改变;2)行为测试
(包括唾液皮质醇检测)结果
亦无组间差异
[76] 以53只表现出高度焦虑症状的
收容犬为对象,通过为期6周的
试验评估Trp治疗的临床效果
根据Trp添加剂量随机分为Trp-1组
(0.6%)和Trp-2组(1.2%),首周
均饲喂标准对照饲粮
每周记录犬行为变化并
检测粪便皮质醇水平
1)第6周,组间的社会行为差异
显著;Trp-2组粪便皮质醇水平
下降显著;2)Trp-2组表现异常行
为的时间显著减少。因此,添加高剂
量Trp显著减少应激
相关异常行为,缓解焦虑
并改善行为
[77] 16只西伯利亚雪橇犬(9只雌性
和7只雄性),年龄为(4.8±2.5)岁,
分为2组:对照组(n=8)、
Trp组(n=8)
2种饲粮:1)对照组饲粮:Trp含量
0.46%(以干物质基础计);Trp∶
LNAAs=0.047∶1;2)Trp组饲粮:
未直接给出Trp百分比;Trp∶LNAAs=
0.075∶1
血清5-HT、Trp水平,粪便
代谢物以及粪便评分
Trp组的血清5-HT水平显著升高;
粪便评分改善,缓解焦虑并减少腹泻
[78] 36只健康成年混血母猎犬,
评估在添加不同水平Trp
(0.05%、0.10%和0.15%)的全
价平衡饲粮后的行为变化;分别
在基线期及随后每8周(共24周)
对每只犬进行行为评估
4种饲粮:1)基础饲粮(Trp含量
0.18%,以饲喂基础计);2)05Trp组
饲粮(0.18%基础水平上添加0.05%
Trp);3)10Trp组饲粮(0.18%基础
水平上添加0.10% Trp);4)15Trp
组饲粮(0.18%基础水平上
添加0.15% Trp)
记录其对熟悉人员与陌生人员
接近时的行为参数;评估行为
参数:活动度、距离、
自信度、耳位
不同水平Trp对犬面对熟悉或
陌生人员接近时的行为反应
影响甚微,特别是最高
Trp添加组与基础饲粮组间未显
现任何可观测差异;在基础饲粮组
与Trp添加组之间,未观察到
持续且显著的行为差异

Trp:色氨酸 tryptophan;LNAAs:大分子中性氨基酸 large neutral amino acids;5-HT:5-羟色胺 5-hydroxytryptamine。

关于饲粮中添加Trp对犬攻击行为的影响,现有研究结果并不一致。一些研究发现,饲粮中添加Trp能减少攻击行为和应激相关行为;但另一些研究则未观察到其对异常重复行为犬[79]、焦虑犬[36]或正常犬[78]的行为产生显著影响。例如,Templeman等[78]在对照组与补充Trp试验组之间,并未观察到持续且显著的行为差异。这种矛盾的结果很可能由多种因素导致,主要包括攻击行为亚型的异质性、研究方法的差异以及Trp代谢的复杂性等。

4.1 Trp干预效果与攻击行为亚型的相关性

4.1.1 对特定亚型作用有限

Denapoli等[12]的研究结果揭示了攻击行为分型与营养干预之间的关联,在低蛋白质饲粮中添加Trp,可能有助于缓解领地性攻击行为;对于支配性攻击犬,降低饲粮蛋白质水平,或添加Trp,可能是更有效的策略。这表明Trp干预的效果具有亚型特异性。具体而言,Trp干预对由焦虑、恐惧或应激驱动的攻击行为效果更好,例如领地性攻击、部分恐惧性攻击。而对源于自信、建立社会等级的支配性攻击,效果则有限。支配性攻击可能与更为稳定的神经特质相关,因此对单纯的Trp干预不敏感,需要更全面的饮食结构调整,例如,降低饲粮蛋白质水平来改变Trp∶LNAAs比值。

4.1.2 对非特异性焦虑或应激相关行为的效果明显

在收容所等慢性应激环境下,添加Trp显示出更好的效果,如Anzola等[76]和Templeman等[77]的研究观察到,犬的焦虑相关行为减少,生理指标也得到改善。这是因为慢性应激会消耗体内的Trp储备,并可能使KYN代谢途径过度活跃,从而影响5-HT的合成。在此背景下,添加Trp的作用是纠正一种普遍的“5-HT功能缺陷”状态,而不是针对某一特定类型的攻击行为。

4.1.3 研究设计与分型的局限性

许多早期研究,如Mugford[75]并未对攻击行为进行严格分型,仅笼统地描述为“攻击行为”,这无疑混淆了不同神经基础的行为表型,导致结果难以解读和比较。未来研究必须在试验设计阶段,采用标准化的行为评估工具对犬的攻击行为进行精确分型。

4.2 其他影响因素

4.2.1 受试犬的基线状态

Trp干预可能主要适用于特定个体。这些个体通常因遗传、环境应激或营养状况,导致中枢5-HT水平偏低或Trp耗竭。对于5-HT系统功能正常的犬,额外补充Trp可能无法产生显著的行为效应。这就解释了为何生活在收容所等慢性应激环境下的犬,对Trp干预的反应通常比普通家庭饲养犬更明显[80]。这类犬可能因长期压力导致对Trp的需求增加,因而饲粮中添加Trp会有更高的收益[81]

4.2.2 饲粮背景与Trp生物利用度

如果只添加Trp,却不考虑饲粮的Trp∶LNAAs比值,往往会削弱干预效果。高蛋白质饲粮会拮抗Trp通过BBB,从而抵消了添加Trp的效果。因此,采用低蛋白质饲粮并优化Trp∶LNAAs比值,是Trp有效发挥行为调控作用的关键前提[82]

4.2.3 Trp添加剂量和干预时间

现有研究中,Trp添加剂量和干预时间差异很大。部分研究的添加剂量可能过低,未能达到改变中枢5-HT系统功能所需的阈值[79],而干预时间过短,则可能无法观察到行为上的适应性变化。

4.2.4 行为评估方法的差异

不同研究采用的行为评估方法各不相同,包括主人问卷、实验室行为测试、生理指标等。这些方法的敏感性和可靠性并不一致,直接影响了对干预效果的捕捉和最终判断。特别是依靠主人报告的结果,可能受到主观期望偏倚的影响。
另外,多项关于犬攻击行为的研究证实,中枢Trp水平与5-HT水平存在关联。Denapoli等[12]测定攻击性犬的血液,发现Trp水平与5-HT水平呈正相关;Bosch等[36]发现,饲粮中添加Trp能显著提升犬的血浆Trp水平及Trp∶LNAAs比值;Templeman等[77]报告,当饲粮中Trp∶LNAAs比值达到0.075∶1时,犬的血清5-HT水平显著升高,同时粪便质量得到改善;Sechi等[83]给行为异常的犬饲喂含Trp的营养保健品后,观察到血浆5-HT、多巴胺和β-内啡肽水平上升,而血浆皮质醇和去甲肾上腺素水平下降。目前,关于犬的Trp和5-HT水平的研究结论也存在矛盾。Gazzano[84]对恐惧症犬采用碳水化合物分离饲粮,该饲粮通过纯碳水化合物刺激胰岛素分泌,以促进肌肉对LNAAs的摄取,但试验结果显示,血清Trp水平与5-HT水平在时序上并无相关性;Riggio等[41]的试验也得出相似结论,在收容所犬样本中未发现血清Trp水平与5-HT水平存在相关性。这种外周5-HT水平与Trp水平缺乏相关性的现象,可能与BBB的双向调节作用有关。BBB不仅控制着Trp从外周循环向中枢的转运,同时也调控5-HT的反向传递。

5 Trp添加剂量

Trp摄入过量或不足,均可能损害动物健康[85],并影响其行为表现。一项对马急性隔离压力的研究表明,口服Trp导致马轻度兴奋,0.1 mg/kg体重剂量Trp会较未添加组提升马的心率和活动水平[86]。对人而言,过量摄入Trp最常见的副作用是恶心[87]。目前,犬粮中Trp的限量标准尚未确立。美国国家研究委员会(National Research Council,NRC)针对成年维持期犬的营养需求制定了标准:假设饲粮代谢能(metabolizable energy,ME)为4 000 kcal/kg(1 kcal=4.184 kJ)时,犬每日需摄入至少1.1 g/kg Trp,以维持基础健康[88]。据此计算,Trp的最低需求量为0.066 9 g/MJ ME。基于此,NRC建议成年犬维持期的Trp∶LNAAs比值最低为0.061∶1[88]。需要特别关注动物的体重与单位体重摄食量,因为蛋白质和氨基酸的需求是基于机体总蛋白代谢来计算的。NRC按犬体重计算的Trp推荐量为23 mg/(kg·d)[88]。考虑到商业犬粮的营养物质消化率和利用率低于半合成饲粮,美国饲料管理协会(Association of American Feed Control Officials,AAFCO)制定的最低营养标准略高:为0.109 9 g/MJ ME[89];而在商业膨化犬粮的饲喂标准中,Trp的最低含量允许低至0.050 2 g/MJ ME[88]
在一些研究中,补充Trp并未显著改善犬的行为。这些研究所使用的基础饲粮,其Trp含量通常仅略高于AAFCO规定的最低标准[89]。例如,在Templeman等[78]的试验中,所用基础饲粮的Trp含量为0.68 g/1 000 kcal ME,已超过了AAFCO最低标准,但Trp添加剂量最高的试验组(含0.15% Trp+0.18%基础饲粮),其日均摄入的Trp∶LNAAs比值仅为0.058 1∶1,未严格遵循NRC建议的0.061∶1标准,尽管如此,该研究结果对当前的犬饲粮配方实践仍具有参考价值。可以推测,如果饲粮严格按0.061∶1配比(即提高Trp添加剂量并降低蛋白质含量)而非单一Trp标准,犬在面对人接近时可能表现出不同的行为反应,这一点值得后续研究加以验证。
目前,典型犬饲粮中的最低Trp含量是否能满足所有犬的需求,尚不确定。以Bosch等[36]的试验为例:试验组饲粮的Trp含量较对照组提高了200%(参考了银狐[27]和猪[30]研究中100%~300%的补充剂量),实际测定显示,血浆Trp水平及Trp∶LNAAs比值均显著升高,但其增幅(分别为37.4%和31.2%)可能仍未达到能够明显改变5-HT神经传递功能的阈值。在大鼠中的研究表明,只有当血浆Trp∶LNAAs比值超过正常值,并且中枢Trp水平至少翻倍时,5-HT及其代谢物5-HIAA的水平才会显著提升[90];在猪的试验中也观察到,血浆Trp水平倍增后,随之5-HT水平增加11%,5-HIAA水平增加52%[91]。然而,也有研究报道,Trp水平的细微变化即可产生行为效应:食用α-乳白蛋白饲粮的大鼠,与酪蛋白组相比,其血浆Trp水平增加了49%,Trp∶LNAAs比值提高了40%[92],随即表现出焦虑行为的减少[26];人应激易感者在血浆中Trp∶LNAAs比值比饮食α-乳白蛋白后高出48%,唾液皮质醇水平降低,同时认知表现得到改善[93]

6 小结与展望

Trp是5-HT合成的前体,通过调节中枢5-HT系统,影响犬的焦虑、应激及攻击行为。饲粮中Trp的含量及其生物利用度,是决定脑内5-HT合成的关键因素。现有研究证实,Trp在有效控制犬攻击行为问题方面具有潜在作用。然而,饲粮中添加Trp对犬类长期健康和行为的具体影响,仍有待进一步研究。目前,在评估Trp对行为影响的研究中,无论是人类还是犬类的营养指南,都很少将行为指标纳入评价体系。这一局限已被关注并多次指出[94-95]。例如,NRC和AAFCO认证标准均未将动物行为作为重要指标。尽管犬行为评估方法的可靠性仍需完善,但应该采用心率监测、植入式传感器、皮质醇或葡萄糖监测等技术,辅助验证犬的表观行为。这将推动行为指标纳入犬营养指南。未来的研究应突破将攻击行为作为整体研究的范式,需要明确区分攻击行为的不同亚型,并深入探究Trp通过5-HT途径和KYN途径对不同亚型行为的特异性调控机制。研究重点应放在优化Trp∶LNAAs比值上,而非单纯提高Trp水平。同时,需深入探究不同犬种、不同个体的精准营养需求,尤其要注意区分攻击行为的动机与基线生理状态。最终,通过建立针对不同攻击行为亚型的精准营养干预措施,为开发个性化犬饲粮配方提供坚实科学依据,从而更有效地提升犬的福利并保障公共安全。
[1]
SAVOLAINEN P, ZHANG Y P, LUO J, et al. Genetic evidence for an East Asian origin of domestic dogs[J]. Science, 2002, 298(5598):1610-1613.

DOI PMID

[2]
ORTIZ D D, LEZCANO F O. Dog and cat bites:rapid evidence review[J]. American Family Physician, 2023, 108(5):501-505.

[3]
WESTGARTH C, PROVAZZA S, NICHOLAS J, et al. Review of psychological effects of dog bites in children[J]. BMJ Paediatrics Open, 2024, 8(1):e000922.

DOI

[4]
MOXON R, WHITESIDE H, ENGLAND G C W. Incidence and impact of dog attacks on guide dogs in the UK:an update[J]. Veterinary Record, 2016, 178(15):367.

DOI

[5]
KISLEY M A, CHUNG E J, LEVITT H. Investigating the reasons behind companion animal relinquishment:a systematic content analysis of Shelter records for cats and dogs,2018—2023[J]. Animals, 2024, 14(17):2606.

DOI

[6]
HITCHCOCK M, WORKMAN M K, GUTHRIE A P, et al. Factors associated with behavioral euthanasia in pet dogs[J]. Frontiers in Veterinary Science, 2024, 11:1387076.

DOI

[7]
CORSETTI S, BORRUSO S, MALANDRUCCO L, et al. Cannabis sativa L. may reduce aggressive behavior towards humans in shelter dogs[J]. Scientific Reports, 2021, 11(1):2773.

DOI

[8]
VONHOLDT B M, DECANDIA A L, HEPPENHEIMER E, et al. Heritability of interpack aggression in a wild pedigreed population of North American grey wolves[J]. Molecular Ecology, 2020, 29(10):1764-1775.

DOI PMID

[9]
LOCKWOOD R. Ethology,ecology and epidemiology of canine aggression[M]//SERPELL J.The domestic dog:its evolution,behavior,and interactions with people.2nd ed. Cambridge: Cambridge University Press, 2016:160-181.

[10]
CORIA-AVILA G A, PFAUS J G, ORIHUELA A, et al. The neurobiology of behavior and its applicability for animal welfare:a review[J]. Animals, 2022, 12(7):928.

DOI

[11]
KOGAN L R, PACKMAN W, ERDMAN P, et al. US adults’ perceptions of dog breed bans,dog aggression and breed-specific laws[J]. International Journal of Environmental Research and Public Health, 2022, 19(16):10138.

DOI

[12]
DENAPOLI J S, DODMAN N H, SHUSTER L, et al. Effect of dietary protein content and tryptophan supplementation on dominance aggression,territorial aggression, and hyperactivity in dogs[J]. Journal of the American Veterinary Medical Association, 2000, 217(4):504-508.

DOI

[13]
ROSADO B, GARCÍA-BELENGUER S, LEÓN M, et al. Blood concentrations of serotonin,cortisol and dehydroepiandrosterone in aggressive dogs[J]. Applied Animal Behaviour Science, 2010, 123(3/4):124-130.

DOI

[14]
BAYRAM G G, SEMEN Z. Understanding canine aggression:neurobiological insights for a complex behavior[J]. Journal of Istanbul Veterinary Sciences, 2023, 7(2):68-79.

DOI

[15]
TAKAHASHI A, ALEYASIN H, STAVARACHE M A, et al. Neuromodulatory effect of interleukin 1β in the dorsal raphe nucleus on individual differences in aggression[J]. Molecular Psychiatry, 2022, 27(5):2563-2579.

DOI

[16]
FERRARI P F, PALANZA P, PARMIGIANI S, et al. Serotonin and aggressive behavior in rodents and nonhuman primates:predispositions and plasticity[J]. European Journal of Pharmacology, 2005, 526(1/2/3):259-273.

DOI

[17]
HOWELL S, WESTERGAARD G, HOOS B, et al. Serotonergic influences on life-history outcomes in free-ranging male rhesus macaques[J]. American Journal of Primatology, 2007, 69(8):851-865.

PMID

[18]
GOVEAS J S, CSERNANSKY J G, COCCARO E F. Platelet serotonin content correlates inversely with life history of aggression in personality-disordered subjects[J]. Psychiatry Research, 2004, 126(1):23-32.

PMID

[19]
MICZEK K A, FISH E W, DE BOLD J F, et al. Social and neural determinants of aggressive behavior:pharmacotherapeutic targets at serotonin,dopamine and γ-aminobutyric acid systems[J]. Psychopharmacology, 2002, 163(3):434-458.

DOI

[20]
RICHARD D M, DAWES M A, MATHIAS C W, et al. L-tryptophan:basic metabolic functions,behavioral research and therapeutic indications[J]. International Journal of Tryptophan Research, 2009, 2:45-60.

[21]
ROTH W, ZADEH K, VEKARIYA R, et al. Tryptophan metabolism and gut-brain homeostasis[J]. International Journal of Molecular Sciences, 2021, 22(6):2973.

DOI

[22]
MA J X, WANG R, CHEN Y X, et al. 5-HT attenuates chronic stress-induced cognitive impairment in mice through intestinal flora disruption[J]. Journal of Neuroinflammation, 2023, 20(1):23.

DOI PMID

[23]
MOELLER F G, DOUGHERTY D M, SWANN A C, et al. Tryptophan depletion and aggressive responding in healthy males[J]. Psychopharmacology, 1996, 126(2):97-103.

PMID

[24]
SA M, YING L, TANG A G, et al. Simultaneous determination of tyrosine,tryptophan and 5-hydroxytryptamine in serum of MDD patients by high performance liquid chromatography with fluorescence detection[J]. Clinica Chimica Acta, 2012, 413(11/12):973-977.

DOI

[25]
MOSKOWITZ D S, PINARD G, ZUROFF D C, et al. The effect of tryptophan on social interaction in everyday life:a placebo-controlled study[J]. Neuropsychopharmacology, 2001, 25(2):277-289.

DOI

[26]
OROSCO M, ROUCH C, BESLOT F, et al. Alpha-lactalbumin-enriched diets enhance serotonin release and induce anxiolytic and rewarding effects in the rat[J]. Behavioural Brain Research, 2004, 148(1/2):1-10.

DOI

[27]
ROUVINEN K, ARCHBOLD S, LAFFIN S, et al. Long-term effects of tryptophan on behavioural response and growing-furring performance in silver fox (Vulpes vulpes)[J]. Applied Animal Behaviour Science, 1999, 63(1):65-77.

DOI

[28]
CHAMBERLAIN B, ERVIN F R, PIHL R O, et al. The effect of raising or lowering tryptophan levels on aggression in vervet monkeys[J]. Pharmacology Biochemistry and Behavior, 1987, 28(4):503-510.

PMID

[29]
NOVAK M A, MEYER J S. A rhesus monkey model of non-suicidal self-injury[J]. Frontiers in Behavioral Neuroscience, 2021, 15:674127.

DOI

[30]
HENRY M, SHOVELLER A K, O’SULLIVAN T L, et al. Effect of varying levels of dietary tryptophan on aggression and abnormal behavior in growing pigs[J]. Frontiers in Veterinary Science, 2022, 9:849970.

DOI

[31]
SAIDI O, ROCHETTE E, DORÉ É, et al. Randomized double-blind controlled trial on the effect of proteins with different tryptophan/large neutral amino acid ratios on sleep in adolescents:the PROTMORPHEUS study[J]. Nutrients, 2020, 12(6):1885.

DOI

[32]
顾炯, 刘明, 刘幸, 等. 色氨酸代谢调控机体免疫功能的机制及其在猪生产中应用的研究[J]. 动物营养学报, 2024, 36(10):6147-6157.

DOI

GU J, LIU M, LIU X, et al. Study on mechanism of tryptophan metabolism regulating immune function and its application in pig production[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6147-6157. (in Chinese)

DOI

[33]
GAO K, MU C L, FARZI A, et al. Tryptophan metabolism:a link between the gut microbiota and brain[J]. Advances in Nutrition, 2020, 11(3):709-723.

DOI

[34]
BADAWY A A B, GUILLEMIN G J. Species differences in tryptophan metabolism and disposition[J]. International Journal of Tryptophan Research, 2022, 15:11786469221122511.

[35]
SADOK I, JEDRUCHNIEWICZ K. Dietary kynurenine pathway metabolites-source,fate,and chromatographic determinations[J]. International Journal of Molecular Sciences, 2023, 24(22):16304.

DOI

[36]
BOSCH G, BEERDA B, HENDRIKS W H, et al. Impact of nutrition on canine behaviour:current status and possible mechanisms[J]. Nutrition Research Reviews, 2007, 20(2):180-194.

DOI

[37]
MAGANIN A G, SOUZA G R, FONSECA M D, et al. Meningeal dendritic cells drive neuropathic pain through elevation of the kynurenine metabolic pathway in mice[J]. Journal of Clinical Investigation, 2022, 132(23):e153805.

DOI

[38]
CAVALERI D, CROCAMO C, MORELLO P, et al. The kynurenine pathway in attention-deficit/hyperactivity disorder:a systematic review and meta-analysis of blood concentrations of tryptophan and its catabolites[J]. Journal of Clinical Medicine, 2024, 13(2):583.

DOI

[39]
WIEDŁOCHA M, MARCINOWICZ P, JANOSKA-JAŹDZIK M, et al. Gut microbiota,kynurenine pathway and mental disorders-review[J]. Progress in Neuro-Psychopharmacology and Biological Psychiatry, 2021, 106:110145.

DOI

[40]
LIAQAT H, PARVEEN A, KIM S Y. Neuroprotective natural products' regulatory effects on depression via gut-brain axis targeting tryptophan[J]. Nutrients, 2022, 14(16):3270.

DOI

[41]
RIGGIO G, MARITI C, SERGI V, et al. Serotonin and tryptophan serum concentrations in shelter dogs showing different behavioural responses to a potentially stressful procedure[J]. Veterinary Sciences, 2020, 8(1):1.

DOI

[42]
OBERBAUER A M, LARSEN J A. Amino acids in dog nutrition and health[J]. Advances in Experimental Medicine and Biology, 2021, 1285:199-216.

DOI PMID

[43]
LIU N, SUN S Q, WANG P J, et al. The mechanism of secretion and metabolism of gut-derived 5-hydroxytryptamine[J]. International Journal of Molecular Sciences, 2021, 22(15):7931.

DOI

[44]
ROTHHAMMER V, MASCANFRONI I D, BUNSE L, et al. Type Ⅰ interferons and microbial metabolites of tryptophan modulate astrocyte activity and central nervous system inflammation via the aryl hydrocarbon receptor[J]. Nature Medicine, 2016, 22(6):586-597.

DOI

[45]
KAŁUŻNA-CZAPLIŃSKA J, GATAREK P, CHIRUMBOLO S, et al. How important is tryptophan in human health?[J]. Critical Reviews in Food Science and Nutrition, 2019, 59(1):72-88.

DOI

[46]
MARCOBAL A, KASHYAP P C, NELSON T A, et al. A metabolomic view of how the human gut microbiota impacts the host metabolome using humanized and gnotobiotic mice[J]. The ISME Journal, 2013, 7(10):1933-1943.

DOI

[47]
CLARKE G, GRENHAM S, SCULLY P, et al. The microbiome-gut-brain axis during early life regulates the hippocampal serotonergic system in a sex-dependent manner[J]. Molecular Psychiatry, 2013, 18(6):666-673.

DOI PMID

[48]
WILLIAMS B B, VAN BENSCHOTEN A H, CIMERMANCIC P, et al. Discovery and characterization of gut microbiota decarboxylases that can produce the neurotransmitter tryptamine[J]. Cell Host & Microbe, 2014, 16(4):495-503.

[49]
AGUS A, PLANCHAIS J, SOKOL H. Gut microbiota regulation of tryptophan metabolism in health and disease[J]. Cell Host & Microbe, 2018, 23(6):716-724.

[50]
MAWE G M, HOFFMAN J M. Serotonin signalling in the gut-functions,dysfunctions and therapeutic targets[J]. Nature Reviews Gastroenterology & Hepatology, 2013, 10(8):473-486.

[51]
MANDIĆ A D, WOTING A, JAENICKE T, et al. Clostridium ramosum regulates enterochromaffin cell development and serotonin release[J]. Scientific Reports, 2019, 9(1):1177.

DOI

[52]
O’MAHONY S M, CLARKE G, BORRE Y E, et al. Serotonin,tryptophan metabolism and the brain-gut-microbiome axis[J]. Behavioural Brain Research, 2015, 277:32-48.

DOI

[53]
SUN J, WANG F Y, HONG G L, et al. Antidepressant-like effects of sodium butyrate and its possible mechanisms of action in mice exposed to chronic unpredictable mild stress[J]. Neuroscience Letters, 2016, 618:159-166.

DOI PMID

[54]
ZHU L P, WEI T T, GAO J, et al. Salidroside attenuates lipopolysaccharide (LPS) induced serum cytokines and depressive-like behavior in mice[J]. Neuroscience Letters, 2015, 606:1-6.

DOI PMID

[55]
JENKINS T A, NGUYEN J C D, POLGLAZE K E, et al. Influence of tryptophan and serotonin on mood and cognition with a possible role of the gut-brain axis[J]. Nutrients, 2016, 8(1):56.

DOI

[56]
FERNSTROM J D. Large neutral amino acids:dietary effects on brain neurochemistry and function[J]. Amino Acids, 2013, 45(3):419-430.

DOI

[57]
FINET S, HE F, UTTERBACK P L, et al. Nutrient profile,amino acid digestibility,true metabolizable energy, and indispensable amino acid scoring of whole hemp seeds for use in canine and feline diets[J]. Journal of Animal Science, 2023, 101:skad106.

[58]
DODMAN N H, REISNER I, SHUSTER L, et al. Effect of dietary protein content on behavior in dogs[J]. Journal of the American Veterinary Medical Association, 1996, 208(3):376-379.

DOI

[59]
BADAWY A A B. Modulation of tryptophan and serotonin metabolism as a biochemical basis of the behavioral effects of use and withdrawal of androgenic-anabolic steroids and other image- and performance-enhancing agents[J]. International Journal of Tryptophan Research, 2018, 11:1178646917753422.

DOI

[60]
CHAOULOFF F. Physiopharmacological interactions between stress hormones and central serotonergic systems[J]. Brain Research Reviews, 1993, 18(1):1-32.

DOI

[61]
MCMENAMY R H. Binding of indole analogues to human serum albumin.Effects of fatty acids[J]. The Journal of Biological Chemistry, 1965, 240(11):4235-4243.

DOI

[62]
BADAWY A A. The functions and regulation of tryptophan pyrrolase[J]. Life Sciences, 1977, 21(6):755-768.

PMID

[63]
HUANG H Y, TSAO S P, YEH T H. Branched-chain amino acids in Parkinson’s disease:molecular mechanisms and therapeutic potential[J]. International Journal of Molecular Sciences, 2025, 26(14):6992.

DOI

[64]
HERRERA C P, SMITH K, ATKINSON F, et al. High-glycaemic index and -glycaemic load meals increase the availability of tryptophan in healthy volunteers[J]. British Journal of Nutrition, 2011, 105(11):1601-1606.

DOI

[65]
JONES L A, SUN E W, MARTIN A M, et al. The ever-changing roles of serotonin[J]. International Journal of Biochemistry and Cell Biology, 2020, 125:105776.

DOI

[66]
LESCH K P, WAIDER J. Serotonin in the modulation of neural plasticity and networks:implications for neurodevelopmental disorders[J]. Neuron, 2012, 76(1):175-191.

DOI

[67]
DOLGACHEVA L P, ZINCHENKO V P, NADEEV A D, et al. Serotonergic regulation in Alzheimer's disease[J]. International Journal of Molecular Sciences, 2025, 26(11):5218.

DOI

[68]
GUZEL T, MIROWSKA-GUZEL D. The role of serotonin neurotransmission in gastrointestinal tract and pharmacotherapy[J]. Molecules, 2022, 27(5):1680.

DOI

[69]
XU M Y, ZHOU E Y, SHI H F. Tryptophan and its metabolite serotonin impact metabolic and mental disorders via the brain-gut-microbiome axis:a focus on sex differences[J]. Cells, 2025, 14(5):384.

DOI

[70]
ESLER M, LAMBERT E, ALVARENGA M, et al. Increased brain serotonin turnover in panic disorder patients in the absence of a panic attack:reduction by a selective serotonin reuptake inhibitor[J]. Stress, 2007, 10(3):295-304.

DOI

[71]
CAKIROĞLU D, MERAL Y, SANCAK A A, et al. Relationship between the serum concentrations of serotonin and lipids and aggression in dogs[J]. Veterinary Record, 2007, 161(2):59-61.

PMID

[72]
LEÓN M, ROSADO B, GARCÍA-BELENGUER S, et al. Assessment of serotonin in serum,plasma,and platelets of aggressive dogs[J]. Journal of Veterinary Behavior, 2012, 7(6):348-352.

DOI

[73]
WRIGHT H F, MILLS D S, POLLUX P M J. Behavioural and physiological correlates of impulsivity in the domestic dog (Canis familiaris)[J]. Physiology & Behavior, 2012, 105(3):676-682.

DOI

[74]
REISNER I R, MANN J J, STANLEY M, et al. Comparison of cerebrospinal fluid monoamine metabolite levels in dominant-aggressive and non-aggressive dogs[J]. Brain Research, 1996, 714(1/2):57-64.

DOI

[75]
MUGFORD R A. The influence of nutrition on canine behaviour[J]. Journal of Small Animal Practice, 1987, 28(11):1046-1055.

DOI

[76]
ANZOLA B, IBAÑEZ M, MORILLAS S, et al. The use of tryptophan in Shelter dogs to treat stress-related anxiety disorders[J]. Revista Científica de la Facultad de Ciencias Veterinarias, 2013, 23(1):26-32.

[77]
TEMPLEMAN J R, THORNTON E, CARGO-FROOM C, et al. Effects of incremental exercise and dietary tryptophan supplementation on the amino acid metabolism,serotonin status,stool quality,fecal metabolites,and body composition of mid-distance training sled dogs[J]. Journal of Animal Science, 2020, 98(5):skaa128.

[78]
TEMPLEMAN J R, DAVENPORT G M, CANT J P, et al. The effect of graded concentrations of dietary tryptophan on canine behavior in response to the approach of a familiar or unfamiliar individual[J]. Canadian Journal of Veterinary Research, 2018, 82(4):294-305.

[79]
KAULFUSS P, HINTZE S, WÜRBEL H. Effect of tryptophana as dietary supplement on dogs with abnormal-repetitive behaviors[J]. Journal of Veterinary Behavior-Clinical Applications and Research, 2009, 4(2):97.

[80]
BOSCH G, BEERDA B, BEYNEN A C, et al. Dietary tryptophan supplementation in privately owned mildly anxious dogs[J]. Applied Animal Behaviour Science, 2009, 121(3/4):197-205.

DOI

[81]
TUBER D S, MILLER D D, CARIS K A, et al. Dogs in animal shelters:problems,suggestions,and needed expertise[J]. Psychological Science, 1999, 10(5):379-386.

DOI

[82]
GOBBO E, ZUPAN ŠEMROV M. Dogs exhibiting high levels of aggressive reactivity show impaired self-control abilities[J]. Frontiers in Veterinary Science, 2022, 9:869068.

DOI

[83]
SECHI S, DI CERBO A, CANELLO S, et al. Effects in dogs with behavioural disorders of a commercial nutraceutical diet on stress and neuroendocrine parameters[J]. Veterinary Record, 2017, 180(1):18.

DOI PMID

[84]
GAZZANO A. Blood serotonin concentrations in phobic dogs fed a dissociated carbohydrate-based diet:a pilot study[J]. Dog Behavior, 2019, 5(2):9-17.

[85]
SAINIO E L, PULKKI K, YOUNG S N. L-tryptophan:biochemical,nutritional and pharmacological aspects[J]. Amino Acids, 1996, 10(1):21-47.

DOI

[86]
BAGSHAW C S, RALSTON S L, FISHER H. Behavioral and physiological effect of orally administered tryptophan on horses subjected to acute isolation stress[J]. Applied Animal Behaviour Science, 1994, 40(1):1-12.

DOI

[87]
YOUNG S N. Behavioral effects of dietary neurotransmitter precursors:basic and clinical aspects[J]. Neuroscience & Biobehavioral Reviews, 1996, 20(2):313-323.

DOI

[88]
National Research Council, Division on Earth and Life Studies. Nutrient requirements of dogs and cats[M]. Washington,D.C.: The National Academies Press, 2006:120-134.

[89]
OFFICIALS A O A F. Dog and cat nutrient profiles[M]. Oxford: AAFCO, 2004:1-16.

[90]
PETERS J C, HARPER A E. Adaptation of rats to diets containing different levels of protein:effects on food intake,plasma and brain amino acid concentrations and brain neurotransmitter metabolism[J]. The Journal of Nutrition, 1985, 115(3):382-398.

DOI

[91]
KOOPMANS S J, GUZIK A C, VAN DER MEULEN J, et al. Effects of supplemental L-tryptophan on serotonin,cortisol,intestinal integrity,and behavior in weanling piglets[J]. Journal of Animal Science, 2006, 84(4):963-971.

DOI

[92]
FEURTÉ S, GEROZISSIS K, REGNAULT A, et al. Plasma Trp/LNAA ratio increases during chronic ingestion of an alpha-lactalbumin diet in rats[J]. Nutritional Neuroscience, 2001, 4(5):413-418.

PMID

[93]
MARKUS C R, OLIVIER B, PANHUYSEN G E, et al. The bovine protein alpha-lactalbumin increases the plasma Trp/LNAA,and in vulnerable subjects it raises brain serotonin activity,reduces cortisol and improves mood under stress[J]. American Journal of Clinical Nutrition, 2000, 71(6):1536-1544.

DOI

[94]
Institute of Medicine (US) Committee on Military Nutrition Research. The role of protein and amino acids in sustaining and enhancing performance[M]. Washington,D.C.: National Academies Press (US), 1999:1-488.

[95]
REEDS P J. Dispensable and indispensable amino acids for humans[J]. The Journal of Nutrition, 2000, 130(7):1835S-1840S.

Outlines

/