REVIEW

Research Progress on Genetic Basis and Feeding Management Regulation Mechanisms of Milk Fat Percentage in Dairy Cows

  • WANG Yongli , 1, 2 ,
  • XU Xiaohui 3 ,
  • CAO Qing 2, 4 ,
  • HU Honglian , 2, *
Expand
  • 1 College of Animal Science and Technology, Inner Mongolia Minzu University, Tongliao 028000, China
  • 2 Research Institute of Biotechnology, Inner Mongolia Academy of Agriculture and Animal Husbandry Sciences, Hohhot 010031, China
  • 3 College of Veterinary Medicine, Inner Mongolia Agricultural University, Hohhot 010018, China
  • 4 College of Animal Science and Technology, Heilongjiang Bayi Agricultural University, Daqing 163319, China
*professor, E-mail:

Received date: 2025-08-14

  Online published: 2026-03-16

Abstract

Milk fat is a key nutritional component of milk, primarily existing in the form of triglycerides and rich in fat-soluble vitamins such as vitamins A, D, E and K. It imparts milk with its characteristic flavor and high energy density, while its content and fatty acid composition determine both the nutritional value of milk and the processing properties of dairy products. Milk fat percentage in dairy cows is influenced by multiple overlapping factors including breed, genetic traits, nutrition, environment and health status, with complex interactions among these factors. This paper reviews recent research advances in the regulation of milk fat percentage through genetic basis and feeding management, aiming to provide theoretical references for improving milk fat content and dairy quality.

Cite this article

WANG Yongli , XU Xiaohui , CAO Qing , HU Honglian . Research Progress on Genetic Basis and Feeding Management Regulation Mechanisms of Milk Fat Percentage in Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 1634 -1643 . DOI: 10.12418/CJAN2026.131

随着市场对牛奶及乳制品的需求不断上升,高乳脂率产品因其较佳的风味和质地而更具市场竞争力。因此,奶牛养殖与育种领域一直致力于通过科学的饲养管理和遗传改良,在保证产奶量和其他乳成分稳定的前提下,实现对乳脂率的合理调控。牛奶富含蛋白质、脂肪、钙、磷及多种维生素等营养成分。其中,乳脂赋予牛奶浓郁口感与能量,主要由饱和脂肪酸(SFA)与不饱和脂肪酸(UFA)合成的甘油三酯(TG)构成,并含有脂溶性维生素以及共轭亚油酸(CLA)、鞘磷脂等有益于人体健康的生物活性成分[1]。脂肪酸(FA)作为脂质的关键组成部分,其结构和性质对动物机体健康与代谢具有深远影响,是研究牛奶营养功能的重要基础。SFA主要存在于动物脂肪中,与脂肪的高熔点、高硬度相关;UFA则与低熔点、高柔软度相关,两者的比例是决定奶酪、黄油等高脂乳制品品质的关键指标[2]。已有研究证实,膳食中以UFA替代SFA可改善血液脂质组成,有助于降低心血管疾病与糖尿病的患病风险[3]。Tian等[4]研究发现,牛奶中FA的合成和代谢受多种基因及其单核苷酸多态性(SNP)的调控,例如参与FA合成的脂肪酸合成酶(fatty acid synthase,FASN)、乙酰辅酶A羧化酶α(acetyl-CoA carboxylase alpha,ACACA),以及与FA转运相关的二酰甘油O-酰基转移酶1(diacylglycerol O-acyltransferase 1,DGAT1)等。Gallardo等[5]研究表明,在奶牛饲粮中添加富含SFA的饲料时,SFA可直接作为乳腺合成乳脂的原料,且在瘤胃内相对稳定,不会产生抑制乳脂合成的中间产物;而饲粮中富含UFA,尤其是亚油酸、亚麻酸等多不饱和脂肪酸(PUFA)时,乳脂率会显著下降。此外,季节变化、热应激等环境因素可通过减少奶牛散热、降低采食量,导致机体内分泌与代谢紊乱,从而在一定程度上影响其生理状态及乳脂率[6-7]。因此,深入解析乳脂合成的机制及其影响因素,并采取针对性调控措施,有助于提升奶牛乳脂率,改善养殖管理水平,进而降低养殖场的经济损失。本文系统阐述了品种、遗传多态性、营养、环境、挤奶方式、疾病等多重因素对奶牛乳脂率的影响。其中,品种差异和遗传多态性作为内在决定因素,为乳脂的形成奠定了遗传基础,而饲养管理则通过调控营养供给和生理稳态发挥外部调节作用。通过对这些因素的系统分析,旨在为揭示奶牛遗传基础与饲养管理对乳脂率的调控机制提供理论支撑,并为后续乳品质量改进研究提供科学依据。

1 品种对乳脂率的影响

我国饲养的奶牛以乳用型和乳肉兼用型为主,其中乳用型主要包括荷斯坦奶牛、娟姗牛,乳肉兼用型则以西门塔尔牛、三河牛、新疆褐牛等品种为代表。在一项奶牛乳脂肪酸成分测定的研究中发现,娟姗牛的乳脂率为4.73%,位居首位,显著高于其他奶牛品种,其乳脂率是荷斯坦奶牛的1.3倍;乳肉兼用型奶牛中,新疆褐牛的乳脂率为4.07%,优于三河牛和西门塔尔牛[8]。Maurice-Van等[9]研究表明,娟姗牛的乳脂率显著高于荷斯坦奶牛,但其乳中UFA、单不饱和脂肪酸(MUFA)、棕榈油酸(C16∶1 cis-9)和油酸(C18∶1 cis-9)的含量较低。而荷斯坦奶牛的乳脂率虽低于娟姗牛,但其乳脂肪酸组成具有一定优势,尤其是十八碳烯酸(C18∶1)含量相对较高[10-11]。这表明荷斯坦奶牛的乳脂质地更为柔软,在黄油等高脂乳制品加工中可表现出更好的涂抹性,能够提升产品应用价值。另有研究表明,意大利中部地区以放牧为主的地方乳用品种波多利卡牛乳脂率高达4.63%,其优势在于具备良好的环境适应性、热应激抵抗能力及对多种植物的采食利用能力,这些特性有助于减少乳脂降低综合征(milk fat depression syndrome,MFD)的发生风险;然而,在集约化饲养条件下饲喂高精料饲粮的荷斯坦奶牛,乳脂率从正常的4.22%显著下降至2.86%,且脂肪酸代谢途径发生了异常转变,主要表现为反式-10-十八碳烯酸(C18∶1 trans-10)的过度积累,从而引发了MFD[12]。波兰红牛是由丹麦、德国和瑞典的红牛与当地红牛杂交育成,其乳腺中的FASN基因SNP位点g.16039C/T中的杂合子C/T含量高于荷斯坦奶牛,故波兰红牛乳中对人类健康具有重要作用的C16∶1 cis-9、UFA等FA含量也高于荷斯坦奶牛[13]。此外,饲养管理[5]、自然环境与气候条件[6]、生理特性以及乳房的形态特征均会对不同品种奶牛乳脂率产生显著影响。

2 乳脂合成相关基因对乳脂率的影响

2.1 FA合成相关基因

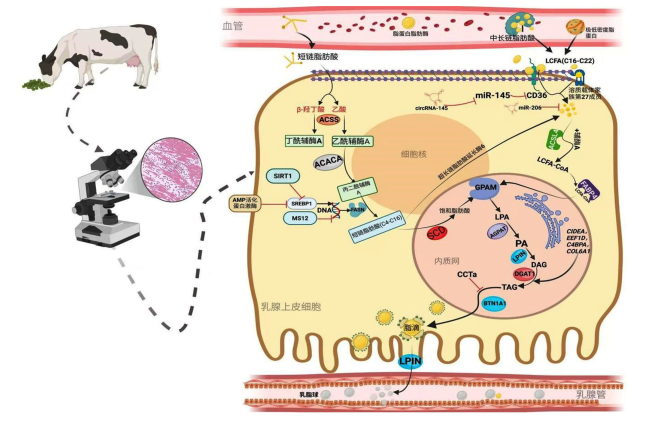
瘤胃微生物分解饲粮产生的乙酸和β-羟丁酸(β-hydroxybutyrate,BHBA)经血液运输,通过毛细血管内皮和间质间隙被动扩散进入牛乳腺上皮细胞(bovine mammary epithelial cell,BMEC)。长链脂肪酸(LCFA)则通过极低密度脂蛋白受体(very low density lipoprotein receptor,VLDLR)和体腔成分水解作用形成小分子TG和FA,进而参与乳脂合成(图1)[14]。该过程涉及多个基因,涵盖FA摄取、转运与合成等环节,如多功能糖蛋白相关基因CD36、溶质载体家族27成员6(solute carrier family 27 member 6,SLC27A6)、脂肪酸结合蛋白3(fatty acid binding protein 3,FABP3)、脂肪酸结合蛋白4(fatty acid binding protein 4,FABP4)、乙酰辅酶A短链合成酶(acetyl-CoA short-chain synthetase,ACSS)以及长链酰基辅酶A合成酶4(long-chain acyl-CoA synthetase 4,ACSL4)等。CD36和SLC27A6均为参与LCFA摄取的跨膜蛋白,能够促进FA从血液进入细胞进行代谢。Gao等[15]研究表明,BMEC中CD36的活性可受泛素化调控而进入溶酶体降解途径。Chen等[16]在BMEC中发现,微小RNA-145(miR-145)表达上调能显著抑制泌乳期CD36的活性,使TG含量降低约50%;相对地,环状RNA-02191能够通过竞争性结合miR-145,抑制其对CD36转录的负向调控作用,进而使TG含量增加1.63倍。miRNA是一类内源性、长度为18~25个核苷酸的小分子非编码RNA,近年来受到广泛关注。它在维持基因表达平衡、促进组织细胞正常发育中发挥重要作用;而在奶牛乳脂合成中,miRNA作为负调控因子,提示乳脂形成并非单基因驱动的过程,可能是由miRNA主导的转录后调控网络与代谢通路协同作用的结果。SLC27A6作为脂肪酸转运蛋白家族成员,也参与FA的跨膜转运,同时具有脂肪酸酰基辅酶A合成酶活性,有助于FA在细胞内的活化与代谢。研究表明,抑制SLC27A6活性可降低软脂酸(C16∶0)和硬脂酸(C18∶0)的比例,同时增加TG合成,提高乳脂率[17]。乙酸和BHBA在ACSS催化下转化为乙酰辅酶A和β-羟基丁酸辅酶A,为乳脂合成提供前体物质;而PUFA则在ACSL4激活下活化为相应酰基辅酶A,进而参与脂质代谢与膜磷脂构建。ACSL4表达水平的提高可显著上调FA合成相关酶基因的表达,并在奶牛泌乳中后期通过抑制脂肪酸氧化,促进FA积累与脂质合成,最终提升乳脂率[14,18]
图1 奶牛乳脂合成的作用机制

红线:抑制作用 inhibition;LCFA:长链脂肪酸 long-chain fatty acids;ACSS:乙酰辅酶A短链合成酶 acetyl-CoA short-chain synthetase;ACACA:乙酰辅酶A羧化酶α acetyl-CoA carboxylase alpha;SIRT1:沉默信息调节因子1 sirtuin 1;SREBP1 固醇调节元件结合蛋白1 sterol regulatory element-binding protein 1;AMP:腺苷一磷酸 adenosine monophosphate;FASN:脂肪酸合成酶 fatty acid synthase;ACSL4:长链酰基辅酶A合成酶4 long-chain acyl-CoA synthetase 4;GPAM:线粒体甘油-3-磷酸酰基转移酶 mitochondrial glycerol-3-phosphate acyltransferase;LPA:溶血磷脂酸 lysophosphatidic acid;PA:磷脂酸 phosphatidic acid;LPIN:脂蛋白 lipin;DGAT1:二酰甘油O-酰基转移酶1 diacylglycerol O-acyltransferase 1;BTN1A1:嗜乳脂蛋白亚家族1成员A1 butyrophilin subfamily 1 member A1;CIDEA:细胞死亡诱导的DNA片段化因子-α-样效应器A cell death-inducing DNA fragmentation factor A-like effector A;COL6A1:Ⅵ型胶原蛋白α1链 collagen type Ⅵ alpha 1 chain;C4BPA:补体成分4结合蛋白α complement component 4 binding protein alpha;EEF1D:真核翻译延伸因子1δ eukaryotic translation elongation factor 1 delta;FABP4:脂肪酸结合蛋白4 fatty acid binding protein 4;miR-145:微小RNA-145 microRNA-145;miR-206:微小RNA-206 microRNA-206;circRNA-145:环状RNA-145 circular RNA-145;AGPAT:1-酰基甘油-3-磷酸O-酰基转移酶 1-acylglycerol-3-phosphate O-acyltransferase;SCD:硬脂酰辅酶A去饱和酶 stearoyl-CoA desaturase;DAG:二酰甘油 diacylglycerol;TAG:三酰甘油 triacylglycerol;CCTα:磷酸胆碱胞苷酰转移酶α choline-phosphate cytidylyltransferase alpha;MSi2:RNA结合蛋白Musashi 2 RNA-binding protein Musashi 2。

Fig.1 Mechanism of milk fat synthesis in dairy cows[14]

2.2 TG合成相关基因

TG是乳脂的主要成分,占乳脂总量的98%,其在BMEC内质网膜上通过酶促反应合成。起始物质酰基辅酶A来源于乳腺从头合成或外源摄取的脂肪酸,并在线粒体甘油-3-磷酸酰基转移酶(mitochondrial glycerol-3-phosphate acyltransferase,GPAM)催化下与甘油-3-磷酸结合形成骨架结构。GPAM基因在内含子和外显子区域存在3种SNP,其中E20-3386G>A位点的GA基因型与乳脂率密切相关[19]。Yu等[20]利用CRISPR/Cas9技术对BMEC中GPAM基因靶向编辑后发现,与野生型细胞相比,GPAM基因缺失的BMEC中TG和胆固醇含量显著降低。RNA测序结果表明,该基因的缺失显著降低了乳脂代谢相关基因长链酰基辅酶A合成酶5(long-chain acyl-CoA synthetase 5,ACSL5)、FABP3和1-酰基甘油-3-磷酸O-酰基转移酶6(1-acylglycerol-3-phosphate O-acyltransferase 6,AGPAT6)基因的表达水平,进而导致乳脂率下降。AGPAT6可在乳脂合成底物乙酸的调控下被激活,这一调控过程依赖过氧化物酶体增殖物激活受体γ(peroxisome proliferator-activated receptor gamma,PPARγ)信号通路,其作用是将溶血磷脂酸(LPA)转化为磷脂酸(PA)。而PA作为关键的第二信使,进一步激活BMEC内哺乳动物雷帕霉素靶蛋白复合体1(mechanistic target of rapamycin complex 1,mTORC1),并最终通过其下游的DGAT1催化反应促进TG的生成[21]。在奶牛中,乳脂合成关键基因DGAT1存在K232A多态性,其中K等位基因利于提升奶牛的乳脂率,A等位基因则与奶牛的产奶量提升密切相关。若将1个K等位基因替换为A等位基因,会造成奶牛日产奶量下降3 L,而乳脂率则增加0.81%,这表明乳脂合成相关基因及其多态性对奶牛产奶性状具有显著影响[22]。近期研究亦发现,BMEC中存在新的TG代谢调控基因,这些基因可通过促进TG合成潜在影响奶牛乳脂率,包括Ⅵ型胶原蛋白α1链(collagen type Ⅵ alpha 1 chain,COL6A1)、真核翻译延伸因子1δ(eukaryotic translation elongation factor 1 delta,EEF1D)、补体成分4结合蛋白α(complement component 4 binding protein alpha,C4BPA)等,目前已被证实对乳脂率具有显著影响[23-25]。其中,EEF1D基因的G等位基因可通过募集糖皮质醇激素反应元件结合蛋白(glucocorticoid response element-binding protein,GREB)提高EEF1D基因启动子活性,并通过磷脂酰肌醇3激酶-蛋白激酶B(phosphoinositide 3-kinase-protein kinase B,PI3K-AKT)、腺苷酸活化蛋白激酶(AMP-activated protein kinase,AMPK)和PPARγ信号通路显著提升乳脂率[24]

2.3 脂滴形成与分泌相关基因

乳脂以乳脂肪球(milk fat globule,MFG)的形式分泌。MFG由乳腺上皮细胞内的TG脂滴被磷脂和蛋白质包裹形成,小脂滴在胞内不断融合增大,最终分泌至乳汁中[26]。研究显示,脂滴包膜蛋白1(perilipin 1,PLIN1)在BMEC中可通过上调脂质合成相关基因[PPARγ、CCAAT增强子结合蛋白α(CCAAT/enhancer-binding protein alpha,C/EBPα)、CCAAT增强子结合蛋白β(CCAAT/enhancer-binding protein beta,C/EBPβ)、FABP4、FASN]并抑制分解基因[激素敏感脂肪酶(hormone-sensitive lipase,HSL)、脂肪甘油三酯脂肪酶(adipose triglyceride lipase,ATGL)]表达,显著促进TG积累和脂滴形成。同时,PLIN1能增强固醇调节元件结合蛋白1(sterol regulatory element-binding protein 1,SREBP1)的磷酸化水平(而非总蛋白水平);功能验证试验进一步证实,SREBP1的磷酸化是PLIN1介导乳脂合成的必需环节,阻断PLIN1活性可消除其促脂效应[27]。脂滴包膜蛋白2(perilipin 2,PLIN2)基因位于第8号染色体第5区,其c.*302T>C位点的核苷酸替换能显著影响乳脂肪酸组成,包括癸酸(C10∶0)、十一烷酸(C11∶0)、月桂酸(C12∶0)、C16∶0含量以及中链脂肪酸(MCFA)和LCFA总量,并在低乳脂率奶牛中表达水平较低[28-29]。这提示PAT蛋白家族在乳脂生成与分泌过程中具有重要作用,其功能与遗传变异共同决定奶牛乳脂性状,为未来通过分子育种或靶向调控策略优化乳脂率提供了依据。在分子水平上,脂滴的形成与生长还受到多种特殊蛋白的调控。嗜乳脂蛋白亚家族1成员A1(butyrophilin subfamily 1 member A1,BTN1A1)是一种L型膜蛋白,对调节脂滴大小起关键作用;BTN1A1基因失活可导致细胞膜中磷脂酰胆碱(PC)/磷脂酰乙醇胺(PE)比例下降,同时显著降低FASNPPARγ表达水平。Du等[30]研究发现,脂蛋白1(LPIN1)基因第6个编码外显子的序列变异与新西兰荷斯坦-弗里斯兰×泽西杂交奶牛的乳脂率和乳蛋白率密切相关,LPIN1在调节乳脂和乳蛋白合成中发挥关键作用,有望作为改善奶牛乳品质相关性状的基因标记。磷酸胆碱胞苷酰转移酶α(choline-phosphate cytidylyltransferase alpha,CCTα)是磷脂酰胆碱合成过程中的关键限速酶,其在细胞内蛋白质的折叠、组装和运输过程中发挥重要作用。Yang等[31]通过在BMEC中上调CCTα基因表达,发现CCTα基因能够增加溶酶体与脂滴的共定位,并增强脂质吞噬、降低脂滴大小,进而影响MFG形成并减少乳脂分泌。

3 饲粮对乳脂率的影响

高精料饲粮可显著降低奶牛瘤胃pH,其代谢产物反式-10,顺式-12共轭亚油酸(trans-10,cis-12 CLA)能够抑制乳脂的重新合成,导致乳脂合成的关键底物乙酸和BHBA利用不足,最终导致乳脂率下降。其机理主要在于高精料饲粮改变了瘤胃生物氢化模式,导致以产生trans-10异构体FA为主的微生物菌群如痤疮丙酸杆菌(Cutibacterium acnes)、氨基酸球菌(Acidaminococcus spp.)大量繁殖,从而使具有乳脂抑制作用的trans-10,cis-12 CLA等FA在瘤胃内过度积累。有研究表明,在奶牛饲粮中添加trans-10,cis-12 CLA或饲喂高淀粉高UFA饲粮会显著降低乳脂产量;其中,高淀粉高UFA饲粮对乳脂生成的抑制作用更强且起效更快,并且在整个泌乳期内使乳脂率维持在较低且较为稳定的水平[32]。此外,Guo等[33]通过体内、外试验,系统阐明了trans-10,cis-12 CLA对奶牛乳脂合成的差异化调节机制。在体内试验中,该研究通过给围产期奶牛饲喂136.17 g/d的过瘤胃保护型CLA,证实该物质可在奶牛产后21 d显著降低乳脂率,同时存在提高乳蛋白率的趋势,由此明确了其作为MFD诱发因子的作用。在体外试验中,研究发现trans-10,cis-12 CLA在奶牛乳腺上皮细胞中表现出一种矛盾的调控模式,即它虽能通过上调长链脂肪酸转运蛋白CD36和脂肪分化相关蛋白(adipose differentiation-related protein,ADRP)的基因和蛋白表达水平,促进外源FA摄入并诱导脂滴在胞内初步积累,但却通过显著下调ACACAFASNDGAT1及膜融合蛋白如突触体相关蛋白23(synaptosomal-associated protein 23,SNAP23)、囊泡相关膜蛋白4(vesicle-associated membrane protein 4,VAMP4)的基因和蛋白表达水平,从源头上抑制了FA的从头合成,并阻断了脂滴的融合与最终分泌过程。早期研究也显示,在高谷物饲粮中添加大豆油会抑制纤维降解菌如溶纤维丁酸弧菌(Ruminococcus albus)的活性,同时耐酸乳酸菌及trans-10 CLA生成菌痤疮丙酸杆菌占据优势,进而改变瘤胃不饱和脂肪酸氢化途径,使其由以trans-11 CLA为优势产物的路径,转变为以trans-10 CLA为主要产物的路径。该转变不仅会导致具有生物活性的trans-10,cis-12 CLA含量显著上升,且其累积量会随着瘤胃pH<6.0的持续时间延长而进一步增加,最终显著增强对奶牛乳脂合成的抑制效应[34]。如上所述,未来的研究需进一步探讨这些反式FA及其异构体在不同剂量下与不同组织细胞中的作用机制,从而更好地了解其对乳脂代谢的影响。值得注意的是,饲料品质(如真菌及霉菌毒素污染问题)对奶牛乳脂率也具有至关重要的影响,其中黄曲霉毒素B1(AFB1)、玉米赤霉烯酮(ZEN)、脱氧雪腐镰刀菌烯醇(DON)等主要霉菌毒素对乳脂率的影响尤为显著[35]。马梓峰等[36]采用高剂量(10.00 μmol/L)的ZEN处理BMEC发现,高剂量下ZEN的毒性作用占据主导,可通过诱导氧化应激与细胞损伤抑制乳脂合成。

4 热应激对乳脂率的影响

当环境温度与湿度过高,奶牛无法通过自身调节维持体温平衡时便会引发热应激。温湿指数(THI)是评估奶牛热应激程度的重要指标。研究表明,当THI超过68后,奶牛干物质采食量(DMI)明显减少,血浆中氧化应激标记物含量显著提高,而抗氧化标记物如对氧磷酯酶(paraoxonase,PON)活性显著降低,乳脂率显著下降[37]。相较于乳脂总量的下降,热应激对牛奶中PUFA及UFA合成的影响更为显著,而这些FA遗传力相对较低,易受饲粮组成和环境因素的影响。目前已鉴定出热应激下特定FA和乳脂率变化的候选基因,如位于BTA18染色体上的自分泌运动因子受体(autocrine motility factor receptor,AMFR)基因与PUFA合成相关;而BTA11染色体上的ENS-BTAG00010048091和孕激素相关子宫内膜蛋白(progestagen-associated endometrial protein,PAEP)基因附近的SNP位点rs110436636则与UFA合成显著相关[38]。Chen等[39]研究发现,热应激对奶牛DMI、能量校正乳产量(ECM)和乳蛋白率有显著的负面影响,但对乳脂率和饲料效率影响不显著。这一结果与其他研究存在差异,这可能与不同品种奶牛热耐受性、泌乳阶段有关[13]。就乳脂率变化而言,处于泌乳中晚期的奶牛较泌乳早期奶牛更能耐受热应激,因为泌乳早期奶牛更易受能量负平衡及免疫状态波动的影响。此外,相较于荷斯坦牛,瑞士褐牛的BMEC具备更优的耐热性能。Castellani等[40]通过体外试验,将热应激条件下荷斯坦牛与瑞士褐牛的乳源小细胞外囊泡(milk extracellular vesicles,mEVs)分别作用于牛乳腺上皮细胞系BME-UV1细胞,结果发现:瑞士褐牛来源的mEVs可激活细胞保护机制,具体表现为细胞内活性氧(ROS)含量上升,同时热休克蛋白及抗氧化相关基因表达上调;而荷斯坦牛来源的mEVs则呈现出完全相反的作用趋势。值得注意的是,在对2种牛在热中性与热应激条件下的产奶性能进行对比分析时发现,热应激会显著提高荷斯坦牛的乳脂率,却会降低瑞士褐牛的乳脂率。进一步的产奶量数据对比显示,尽管热应激均会显著抑制2种牛的产奶量,但荷斯坦牛产奶量的下降幅度显著高于瑞士褐牛。据此推测,荷斯坦牛乳脂率在热应激下的升高,或许与其产奶量降幅更大存在关联。

5 挤奶方式对乳脂率的影响

挤奶频率、挤奶间隔和挤奶时间是决定奶牛乳成分的关键管理因素。与每日2次挤奶相比,每日1次挤奶不仅能使乳脂率提高9%~21%,还能改善泌乳早期奶牛的能量负平衡[41]。Sanjayaranj等[42]研究发现,与每日2次挤奶相比,采用每日1次挤奶时奶牛耳部组织中DGAT1基因的SNP位点rs109421300多态性发生显著变化,其中基因型CC等位基因的表达上调31.9%,并与较高的乳脂率表型相关。此外,每日1次挤奶条件下,牛奶中C16∶0和C18∶0比例升高,丁烷酸(C4∶0)和C18∶1 cis-9比例降低。这些研究结果表明,每日1次挤奶方式在改善乳脂营养质量方面具有潜在优势,可提高乳制品中有益脂肪酸的比例并提升其健康价值。然而,MFG形态及FA饱和度的变化可能对黄油的可塑性和涂抹性能产生负面影响,提示在乳制品加工与品质优化中需在营养提升与乳脂物理特性之间寻求合理平衡。相关研究还表明,与每日2次挤奶相比,每日3次挤奶虽能显著提高产奶量,但乳脂率会因稀释效应而降低。Hall等[43]研究指出,泌乳早期采用“3合2”模式(2天内挤奶3次并缩短挤奶间隔)可使乳脂率最高达5.60%,显著高于每日2次挤奶时,这种差异在泌乳中期不显著,且总体上对产奶量和乳成分无不利影响。这意味着“3合2”挤奶策略为奶农提供了管理灵活性,有助于缩短工作时长、提高生产效率。挤奶间隔同样显著影响乳脂率:较短的挤奶间隔会导致MFG膜结构因频繁挤奶而发生重构,进而提高脂蛋白脂肪酶(LPL)活性,引起乳脂自发脂解,导致乳脂率降低[44];而较长的挤奶间隔则因乳汁体积随时间增加而产生稀释效应,使乳脂相对含量下降,乳脂率降低。挤奶时间对乳脂率也有显著影响,特别是夜间挤奶,可使乳脂率显著升高。这可能是由于在夜间核心生物钟基因周期昼夜调节蛋白2(period circadian regulator 2,PER2)调控乳脂代谢,促进了TG的合成,并通过影响瘤胃微生物群落和代谢产物调控BMEC中脂质代谢相关基因的表达[45]

6 疾病对乳脂率的影响

奶牛营养代谢病是由于营养物质摄入不足、过量或代谢紊乱引起的一类疾病,其中亚急性瘤胃酸中毒(subacute ruminal acidosis,SARA)对乳脂率的影响尤为突出。研究表明,SARA奶牛瘤胃中丙酸、丁酸比例升高,乙酸/丙酸比值降低,且血浆中TG、非酯化脂肪酸(NEFA)和胆固醇含量下降,使得乳脂合成底物受限,导致乳脂率降低[46]。由于我国奶牛生产受季节变化及优质牧草供给不足的限制,养殖场和个体饲养者往往在饲粮中补充高精料或易发酵性碳水化合物(如玉米、青贮饲料等)以满足营养和产奶需求,但这种饲喂方式容易诱发SARA。同时,瘤胃微生物产生的脂多糖(LPS)、组胺、琥珀酸等有害物质可经血液循环扩散至全身,引发多种局部和系统性炎症反应,从而间接干扰乳脂合成。肝脏作为脂肪代谢的关键场所,其FA的合成与分解过程直接影响乳脂率。Zuo等[47]研究发现,饲喂高精料饲粮会降低奶牛瘤胃pH并诱发SARA,同时促使革兰氏阴性菌裂解释放大量LPS;LPS进入肝脏后造成损伤,并下调肝脏关键基因叉头盒蛋白A2(forkhead box A2,FOXA2)的基因和蛋白表达水平。该饲喂模式还会导致奶牛肝脏发生严重氧化应激,引起线粒体动态失衡——融合减少、裂变增加,进而阻碍肝脏脂质向乳腺的正常转运,导致乳脂合成底物供应不足、乳脂率下降。奶牛在泌乳早期易发生酮病,这会加重能量负平衡,导致机体脂肪动员增加,释放NEFA进入血液,部分NEFA被乳腺利用合成乳脂,使乳脂率升高。然而,严重酮病奶牛产生的大量BHBA会抑制肝脏中乙酰辅酶A乙酰转移酶2(acetyl-CoA acetyltransferase 2,ACAT2)基因的表达,减少VLDL和低密度脂蛋白胆固醇(low-density lipoprotein cholesterol,LDL-C)的合成,并促进脂滴积累,从而抑制TG从肝脏向外转运,最终影响乳脂率[48]。乳腺炎是奶牛生产中的常见疾病,多由外部细菌感染引起,常伴随乳脂率下降,对乳制品生产效益造成不利影响。Ma等[49]研究表明,饲喂高精料饲粮的奶牛乳腺中瘤胃源性LPS可通过上调炎症通路Toll样受体4(Toll-like receptor 4,TLR4)、核因子-κB(nuclear factor-kappa B,NF-κB)基因和蛋白的表达,破坏BMEC和血乳屏障,诱发乳腺炎症,最终导致乳脂率下降。由此可见,奶牛乳腺炎的发生是外部致病因子与机体内部易感条件交互作用的结果,其中外源性细菌感染直接诱发炎症反应,而内部生理状态则在疾病发生、发展及乳脂代谢受损过程中发挥关键调控作用。LPS介导的全身性炎症在乳脂调控中起主导作用,其对乳脂率的影响涉及瘤胃、肝脏、乳腺乃至血脑屏障等多个层面。因此,未来应结合基础机制研究与养殖实践,探索通过炎症调控和菌群优化来维持乳脂合成稳态的策略,从而有效提升奶牛生产性能和乳品质。

7 小结与展望

奶牛乳脂率受品种差异、遗传背景、营养供给、环境条件及健康状况等多方面因素的影响,单一调控措施难以实现乳脂率的稳定提升。未来研究与实践应注重各调控手段的协同整合,以实现产奶量与乳品质的持续优化。在遗传改良方面,应兼顾产奶量与乳品质,通过挖掘关键基因及分子标记来提高乳脂率,但UFA含量易受环境与饲粮影响,仅依赖遗传选育效果有限;在营养调控方面,需合理选择碳水化合物来源,减少高发酵性谷物的使用,并可添加瘤胃益生菌(如乳酸利用菌、活性干酵母)等饲料添加剂,以维持瘤胃内环境稳态,缓解MFD的发生;在环境管理方面,可通过改善牛舍条件,采用湿帘、喷淋降温及遮阳等措施,降低奶牛热负荷。此外,“3合2”挤奶制度的优化为乳脂率调控提供了新思路,该模式在保障产奶量和乳品质的同时,可提升操作灵活性及提高生产效率。但将这种挤奶模式应用于每日3次挤奶的牧场时,需综合考虑牛群泌乳潜力、不同泌乳阶段及适应期的影响,并权衡产奶量损失与劳动力成本之间的利弊。
[1]
SANJULIÁN L, FERNÁNDEZ-RICO S, GONZÁLEZ-RODRÍGUEZ N, et al. The role of dairy in human nutrition:myths and realities[J]. Nutrients, 2025, 17(4):646.

DOI

[2]
STANIEWSKI B, OGRODOWSKA D, STANIEWSKA K, et al. The effect of triacylglycerol and fatty acid composition on the rheological properties of butter[J]. International Dairy Journal, 2021, 114:104913.

DOI

[3]
SELLEM L, EICHELMANN F, JACKSON K G, et al. Replacement of dietary saturated with unsaturated fatty acids is associated with beneficial effects on lipidome metabolites:a secondary analysis of a randomized trial[J]. The American Journal of Clinical Nutrition, 2023, 117(6):1248-1261.

DOI

[4]
TIAN Z C, ZHANG Y Y, ZHANG H M, et al. Transcriptional regulation of milk fat synthesis in dairy cattle[J]. Journal of Functional Foods, 2022, 96:105208.

DOI

[5]
GALLARDO W B, TEIXEIRA I A M A. Associations between dietary fatty acid profile and milk fat production and fatty acid composition in dairy cows:a Meta-analysis[J]. Animals, 2023, 13(13):2063.

DOI

[6]
ČOBANOVIĆ K, PAJIĆ M, RADINOVIĆ M, et al. Environmental factors affecting milk composition in Holstein cattle breed[J]. Journal of the Hellenic Veterinary Medical Society, 2021, 72(4):3355-3362.

DOI

[7]
JENSEN L M, JANNAMAN E A, PRYCE J E, et al. Effectiveness of the Australian breeding value for heat tolerance at discriminating responses of lactating Holstein cows to heat stress[J]. Journal of Dairy Science, 2022, 105(9):7820-7828.

DOI

[8]
ZOU Y X, CHEN Y F, MENG Q Y, et al. Cow milk fatty acid and protein composition in different breeds and regions in China[J]. Molecules, 2024, 29(21):5142.

DOI

[9]
MAURICE-VAN E M H T, BOVENHUIS H, SOYEURT H, et al. Differences in milk fat composition predicted by mid-infrared spectrometry among dairy cattle breeds in the Netherlands[J]. Journal of Dairy Science, 2013, 96(4):2570-2582.

DOI

[10]
KOSTOVSKA R, DROUIN G, SALAS J J, et al. Multispecies pasture diet and cow breed affect the functional lipid profile of milk across lactation in a spring-calving dairy system[J]. Journal of Dairy Science, 2025, 108(2):1261-1284.

DOI PMID

[11]
于紫桐, 张文安, 周宇, 等. 中国荷斯坦牛、娟姗牛及娟荷杂交牛瘤胃挥发性脂肪酸及乳品质的比较研究[J]. 中国畜牧杂志, 2023, 59(1):136-142.

YU Z T, ZHANG W A, ZHOU Y, et al. Comparative study on rumen volatile fatty acids and milk quality in Holstein,Jersey,and Jersey-Holstein crossbred cows[J]. Chinese Journal of Animal Science, 2023, 59(1):136-142. (in Chinese)

[12]
RINALDI S, CONTÒ M, CLAPS S, et al. Milk fat depression and trans-11 to trans-10 C18∶1 shift in milk of two cattle farming systems[J]. Sustainability, 2022, 14(2):977.

DOI

[13]
PRZYBYLSKA P, KUCZAJ M. Relationship between selected SNPs (g.16024A/G,g.16039T/C and g. 16060A/C) of the FASN gene and the fat content and fatty acid profile in the milk of three breeds of cows[J]. Animals, 2024, 14(13):1934.

DOI

[14]
YU Y, FU R Q, JIN C J, et al. Regulation of milk fat synthesis:key genes and microbial functions[J]. Microorganisms, 2024, 12(11):2302.

DOI

[15]
GAO R, WU Y N, WANG Y H, et al. Ubiquitination and de-ubiquitination in the synthesis of cow milk fat:reality and prospects[J]. Molecules, 2024, 29(17):4093.

DOI

[16]
CHEN Z, WANG Y H, WANG K, et al. CircRNA-02191 regulating unsaturated fatty acid synthesis by adsorbing miR-145 to enhance CD36 expression in bovine mammary gland[J]. International Journal of Biological Macromolecules, 2023, 244:125306.

DOI

[17]
ZHANG H M, SHEN Z L, YANG Z D, et al. Abundance of solute carrier family 27 member 6 (SLC27A6) in the bovine mammary gland alters fatty acid metabolism[J]. Food & Function, 2021, 12(11):4909-4920.

[18]
FAN Y L, HAN Z Y, LU X B, et al. Identification of milk fat metabolism-related pathways of the bovine mammary gland during mid and late lactation and functional verification of the ACSL4 gene[J]. Genes, 2020, 11(11):1357.

DOI

[19]
YU H B, ZHAO Y L, IQBAL A, et al. Effects of polymorphism of the GPAM gene on milk quality traits and its relation to triglyceride metabolism in bovine mammary epithelial cells of dairy cattle[J]. Archives Animal Breeding, 2021, 64(1):35-44.

DOI

[20]
YU H B, IQBAL A, FANG X B, et al. Transcriptome analysis of CRISPR/Cas9-mediated GPAM-/- in bovine mammary epithelial cell-line unravelled the effects of GPAM gene on lipid metabolism[J]. Gene, 2022, 834:146574.

DOI

[21]
LIU C, LIU C P, GONG X Q, et al. PPARγ-AGPAT6 signaling mediates acetate-induced mTORC1 activation and milk fat synthesis in mammary epithelial cells of dairy cows[J]. Journal of Dairy Research, 2022, 89(4):410-412.

DOI

[22]
ARDICLI S, COBANOGLU O, KUL E, et al. A comprehensive analysis of the effects of DGAT1 K232A polymorphism on milk production and fertility traits in Holstein Friesian and Jersey cows reared in Türkiye[J]. Archives Animal Breeding, 2024, 67(4):455-467.

DOI

[23]
HAN B, LIN S, YE W, et al. COL6A1 promotes milk production and fat synthesis through the PI3K-Akt/insulin/AMPK/PPAR signaling pathways in dairy cattle[J]. International of Journal Molecular Sciences, 2025, 26(5):2255.

DOI

[24]
HOU Y L, XIE Y, YANG S H, et al. EEF1D facilitates milk lipid synthesis by regulation of PI3K-Akt signaling in mammals[J]. The FASEB Journal, 2021, 35(5):e21455.

DOI

[25]
IQBAL A, ZIYI P, YU H B, et al. C4BPA:a novel co-regulator of immunity and fat metabolism in the bovine mammary epithelial cells[J]. Frontiers in Genetics, 2022, 12:830566.

DOI

[26]
WANG Y, WU J R, ZHANG H N, et al. Comprehensive review of milk fat globule membrane proteins across mammals and lactation periods in health and disease[J]. Critical Reviews in Food Science and Nutrition, 2025, 65(23):4435-4456.

DOI

[27]
YANG B S, WANG M, WU Z Q, et al. Perilipin1 mediates milk fat synthesis in bovine mammary epithelial cells through SREBP1 phosphorylation[J]. Animal Biotechnology, 2025, 36(1):2497915.

DOI

[28]
LI Y H, ZHOU H, CHENG L, et al. Variation in PLIN2 and its association with milk traits and milk fat composition in dairy cows[J]. The Journal of Agricultural Science, 2020, 158(8/9):774-780.

DOI

[29]
唐娜, 江俊才, 王梦迪, 等. 不同乳脂率德宏奶水牛乳腺组织脂滴形成相关基因的表达研究[J]. 中国畜牧兽医, 2021, 48(12):4545-4553.

DOI

TANG N, JIANG J C, WANG M D, et al. Expression of genes related to lipid droplet formation in mammary tissue of Dehong dairy buffalo with different milk fat contents[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(12):4545-4553. (in Chinese)

[30]
DU X H, ZHOU H T, LIU X, et al. Sequence variation in the bovine lipin-1 gene (LPIN 1) and its association with milk fat and protein contents in New Zealand Holstein-Friesian×Jersey (HF×J)-cross dairy cows[J]. Animals, 2021, 11(11):3223.

DOI

[31]
YANG J N, FAN Y X, KANG F Y, et al. Phosphatidylcholine cytidine transferase α (CCTα) affects LD formation through fusion and lipophagy in bovine mammary epithelial cells[J]. International Journal of Molecular Sciences, 2025, 26(5):2135.

DOI

[32]
BAYAT A R, RAZZAGHI A, SARI M, et al. The effect of dietary rumen-protected trans-10,cis-12 conjugated linoleic acid or a milk fat-depressing diet on energy metabolism,inflammation,and oxidative stress of dairy cows in early lactation[J]. Journal of Dairy Science, 2022, 105(4):3032-3048.

DOI

[33]
GUO Y Y, WEI Z A, ZHANG Y, et al. The effects of trans-10,cis-12 conjugated linoleic acid on the production performance of dairy cows and the expression and transcription regulation of lipid metabolism-related genes in bovine mammary epithelial cells[J]. ACS Omega, 2024, 9(31):34161-34174.

DOI

[34]
ALZAHAL O, OR-RASHID M M, GREENWOOD S L, et al. Effect of subacute ruminal acidosis on milk fat concentration,yield and fatty acid profile of dairy cows receiving soybean oil[J]. Journal of Dairy Research, 2010, 77(3):376-384.

DOI

[35]
GANDRA J R, TAKIYA C S, DEL VALLE T A, et al. Impact of a biological anti-mycotoxin feed additive on aflatoxin milk transfer,performance,and biomarkers of liver and renal function in Jersey cows[J]. Animal Feed Science and Technology, 2025, 319:116181.

DOI

[36]
马梓峰, 李巧, 徐红梅, 等. 玉米赤霉烯酮对奶牛乳腺上皮细胞生长和乳脂合成相关基因表达的影响[J]. 华北农学报, 2024, 39(1):201-210.

DOI

MA Z F, LI Q, XU H M, et al. The effect of zearalenone on the growth of bovine mammary epithelial cells and the expression of genes related to milk fat synthesis[J]. Acta Agriculturae Boreali-Sinica, 2024, 39(1):201-210. (in Chinese)

DOI

[37]
ALBERGHINA D, AMATO A, BRANCATO G, et al. Impact of heat stress on the balance between oxidative markers and the antioxidant defence system in the plasma of mid-lactating Modicana dairy cows[J]. Animals, 2024, 14(14):2034.

DOI

[38]
BOHLOULI M, HALLI K, YIN T, et al. Genome-wide associations for heat stress response suggest potential candidate genes underlying milk fatty acid composition in dairy cattle[J]. Journal of Dairy Science, 2022, 105(4):3323-3340.

DOI

[39]
CHEN L, THORUP V M, KUDAHL A B, et al. Effects of heat stress on feed intake,milk yield,milk composition,and feed efficiency in dairy cows:a Meta-analysis[J]. Journal of Dairy Science, 2024, 107(5):3207-3218.

DOI

[40]
CASTELLANI S, BASIRICÒ L, MAGGIOLINO A, et al. Effects of milk extracellular vesicles from Holstein Friesian and Brown Swiss heat-stressed dairy cows on bovine mammary epithelial cells[J]. Journal of Dairy Science, 2025, 108(2):1978-1991.

DOI PMID

[41]
SANJAYARANJ I, LOPEZ-VILLALOBOS N, BLAIR H T, et al. Fatty acid composition of dairy milk:a case study comparing once- and twice-a-day milking of pasture-fed cows at different stages of lactation[J]. Dairy, 2022, 3(1):174-189.

DOI

[42]
SANJAYARANJ I, MACGIBBON A K H, HOLROYD S E, et al. Association of single nucleotide polymorphism in the DGAT1 gene with the fatty acid composition of cows milked once and twice a day[J]. Genes, 2023, 14(3):767.

DOI

[43]
HALL L S, KUHN-SHERLOCK B, BRYANT R H, et al. Effect of altering milking interval when milking 3 times in 2 days on milk and component yields in pasture-based dairy systems[J]. Journal of Dairy Science, 2023, 106(11):7737-7749.

DOI

[44]
HURTAUD C, BERNARD L, RAU A, et al. Impact of milking interval and time on milk spontaneous lipolysis and composition in dairy cows[J]. Journal of Dairy Science, 2024, 107(12):11697-11707.

DOI

[45]
CHEN Y F, JING Y J, HU L Y, et al. Overexpression of PER2 promotes de novo fatty acid synthesis,fatty acid desaturation,and triglyceride accumulation in bovine mammary epithelial cells[J]. International Journal of Molecular Sciences, 2024, 25(18):9785.

DOI

[46]
WANG K X, SONG D M, ZHANG X L, et al. Effects of high-grain diet on performance,ruminal fermentation,and rumen microbial flora of lactating Holstein dairy cows[J]. Animals, 2024, 14(17):2522.

DOI

[47]
ZUO R K, WANG C, YU Z Y, et al. A high concentrate diet inhibits forkhead box protein A2 expression,and induces oxidative stress,mitochondrial dysfunction and mitochondrial unfolded protein response in the liver of dairy cows[J]. Microbial Pathogenesis, 2024, 188:106570.

DOI

[48]
ZHOU S D, CHEN M R, MENG M J, et al. Subclinical ketosis leads to lipid metabolism disorder by downregulating the expression of acetyl-coenzyme A acetyltransferase 2 in dairy cows[J]. Journal of Dairy Science, 2023, 106(12):9892-9909.

DOI

[49]
MA N, ABAKER J A, WEI G, et al. A high-concentrate diet induces an inflammatory response and oxidative stress and depresses milk fat synthesis in the mammary gland of dairy cows[J]. Journal of Dairy Science, 2022, 105(6):5493-5505.

DOI

Outlines

/