RESEARCH PAPER

Evaluation of Therapeutic Effect of Phellodendron amurense Extract in Different Dosage Forms on Broilers Coinfected with Eimeria and Clostridium perfringens

  • ZHENG Lin , 1 ,
  • ZHANG Jianjian 2 ,
  • WEI Bingdong , 1, *
Expand
  • 1 Institute of Animal Nutrition and Feed Science, Jilin Academy of Agricultural Sciences, Gongzhuling 136100, China
  • 2 Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
*professor, E-mail:

Received date: 2025-07-30

  Online published: 2026-03-16

Abstract

This experiment was conducted to investigate the effects of Phellodendron amurense extract in different dosage forms on growth performance, antioxidant indicators, cytokines, ileum morphological structure and cecal microbiota of broilers coinfected with Eimeria and Clostridium perfringens, so as to clarify their efficacy against broiler necrotic enteritis. A total of 120 healthy 1-day-old Arbor Acres broilers with similar body weight were randomly divided into 5 groups: control group (C group), challenge group (CI group), Phellodendron amurense extract treatment group (CIP group), enteric-coated sustained-release Phellodendron amurense extract treatment group (CIESP group) and antibiotic treatment group (CIA group). Each group had 6 replicates with 4 chicks per replicate. The experimental period was 20 days, including a 3-day pre-test period and a 17-day formal test period [divided into a challenge phase (4 to 9 days of age) and a treatment phase (10 to 20 days of age)]. During the challenge period, except for the C group, the broilers in all other groups were gavaged daily with 1 mL of Eimeria tenella oocyst suspension (33 000 sporocysts/mL) from 4 to 6 days of age, and then with 1 mL of Clostridium perfringens CP4 bacterial suspension (1×10⁹ CFU/mL) from 7 to 9 days of age. The broilers in the C group were gavaged daily with 1 mL of normal saline. All groups were fed a basal diet from 1 to 9 days of age. From 10 to 20 days of age, C and CI groups continued with the basal diet; CIP group was fed the basal diet+0.1 g/kg Phellodendron amurense extract; CIESP group was fed the basal diet+40 g/kg enteric-coated sustained-release Phellodendron amurense extract; CIA group was fed the basal diet+4 g/kg enramycin premix. The results showed as follows: 1) the feed-to-gain ratio (F/G) from 4 to 21 days of age in the CIP group was significantly higher than that in the C and CIESP groups (P<0.05). At the end of the experiment, the survival rate of CI group was 67%, while the survival rates of CIP and CIESP groups (75%) were higher than that of CI group but lower than that of CIA group (83%). 2) The malondialdehyde (MDA) content in serum and ileum in the CI group was significantly higher than that in the C group (P<0.05). The MDA content in serum, jejunum and ileum in the CIP, CIESP and CIA groups was significantly lower than that in the CI group (P<0.05). The total superoxide dismutase (T-SOD) activity in ileum in the CIESP group was extremely significantly higher than that in the CI group (P<0.01), and the glutathione peroxidase (GSH-Px) activity in serum, ileum and cecum was significantly higher than that in the CI group (P<0.05). The T-SOD activity in ileum in the CIA group was extremely significantly higher than that in the CI group (P<0.01). 3) The interleukin-6 (IL-6) content in ileum and cecum and the tumor necrosis factor-α (TNF-α) content in serum in the CI group were extremely significantly higher than those in the C group (P<0.01). Compared with the CI group, the IL-6 and TNF-α contents in serum, as well as the IL-6 content in ileum and cecum, were extremely significantly decreased in the CIP, CIESP and CIA groups (P<0.01); the TNF-α content in ileum was extremely significantly decreased (P<0.01), and the TNF-α content in cecum was significantly decreased (P<0.05) in the CIESP and CIA groups; the TNF-α content in jejunum was extremely significantly decreased in the CIA group (P<0.01). The contents of IL-6 and TNF-α in serum and ileum in the CIESP group were extremely significantly lower than those in the CIP group (P<0.01). 4) The ileal crypt depth (CD) in the CIESP group was significantly lower than that in the C group (P<0.05). The ileal villus height (VH) and CD in the CIA group were significantly lower than those in the C and CIP groups (P<0.05). 5) There was no significant difference in cecal microbiota Alpha diversity among all groups (P>0.05). The relative abundance of cecal Actinobacteria in the CIA group was extremely significantly higher than that in the other 4 groups (P<0.01). The relative abundance of cecal Ruminococcaceae_Ruminococcus in the CIESP group was significantly higher than that in the C, CI and CIP groups (P<0.05). The relative abundance of cecal Butyricicoccus in the CIP and CIESP groups was significantly higher than that in the C group (P<0.05). In conclusion, the enteric-coated sustained-release Phellodendron amurense extract can effectively reduce the increase in pro-inflammatory factor contents induced by coinfection with Eimeria and Clostridium perfringens, repair the damaged ileal tissue morphology, improve the antioxidant capacity, and alter the cecal microbiota structure of broilers.

Cite this article

ZHENG Lin , ZHANG Jianjian , WEI Bingdong . Evaluation of Therapeutic Effect of Phellodendron amurense Extract in Different Dosage Forms on Broilers Coinfected with Eimeria and Clostridium perfringens[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 1935 -1950 . DOI: 10.12418/CJAN2026.156

家禽坏死性肠炎最早于1961年被发现,是一种由产气荚膜梭菌引起的肠道疾病[1]。该病常因产气荚膜梭菌与球虫相伴或相继感染而发生,可导致家禽急性死亡,死亡率高达50%;此外,产气荚膜梭菌在肠道黏膜损伤等情况下还可引发亚临床感染,造成家禽采食量下降、体重减轻[2-3]。据报道,全球约80%的肉鸡携带产气荚膜梭菌,我国肉鸡群体的感染率约为65%,全球每年因产气荚膜梭菌感染导致的家禽产业经济损失高达20亿美元[4-5]。在传统养殖模式下,抗生素是防治家禽坏死性肠炎的常用手段[6],但抗生素滥用引发的耐药性及药物残留等问题日益突出。随着我国饲料端“禁抗”政策的陆续出台,寻求安全、绿色的抗生素替代品已成为当前家禽养殖业亟需解决的问题[7]。黄柏提取物是从芸香科植物黄皮树或黄檗的干燥树皮中提取的天然活性物质。在早期研究中,黄柏提取物就已被证实可以通过调节抗炎细胞因子信号通路、蛋白质合成来治疗胃肠道病原菌感染,特别是细菌引起的腹泻[8-9]。黄柏提取物的主要活性成分包括小檗碱、槲皮素、β-谷甾醇、异山梨胺等。其中,小檗碱具有显著的抑菌功效,不仅对葡萄球菌、沙门氏菌、梭菌、变形杆菌等多种致病菌具有抑制作用,还对产毒性大肠杆菌引起的腹泻具有治疗功效[10]。此外,小檗碱还具有抗炎、抗氧化、提高动物生长性能、调节肠道微生态平衡等功能。Tsujii等[11]研究发现,黄柏可以降低大鼠组织中炎症细胞因子的表达和分泌,减少中性粒细胞的侵袭。杨仕群等[12]研究报道,黄连提取物能够提高肉鸡生长性能,增加肠道有益菌数量,降低机体氧化应激水平。目前关于黄柏提取物对家禽坏死性肠炎雏鸡治疗功效的研究较少,且黄柏提取物在实际应用中存在适口性差、易被消化酶降解等问题。因此,本研究采用缓释包被技术制备肠溶缓释黄柏提取物,探究不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡生长性能、抗氧化指标、细胞因子及肠道健康的影响,以明确不同剂型黄柏提取物对肉鸡坏死性肠炎的作用功效,并为黄柏提取物在缓解肉鸡坏死性肠炎感染中的应用提供数据支撑。

1 材料与方法

1.1 试验材料

产气荚膜梭菌CP4菌株由本实验室从吉林省农业科学院畜牧科学分院试验鸡场采集的鸡粪便中分离、筛选获得,经全基因组测序分析鉴定为产气荚膜梭菌。鸡球虫病四价活疫苗[孢子化卵囊数(1 100±110)个/羽]购自佛山某生物技术有限公司。恩拉霉素预混剂购自江苏某饲料有限公司。黄柏提取物购自陕西某生物技术有限公司,其主要活性成分盐酸小檗碱含量≥99%。肠溶缓释黄柏提取物由实验室自主生产获得,将黄柏提取物制成水溶液喷涂于淀粉纤维素丸芯表面,再用聚丙烯酸树脂乳胶液对其进行包被处理制得肠溶缓释制剂。体外模拟试验表明,该制剂在模拟胃液(pH 2.4)中2 h释放率≤10%,在模拟肠液(pH 6.6)中4 h释放率≥80%。

1.2 试验设计

本研究所有动物试验操作均经吉林省农业科学院动物伦理福利委员会审核批准,试验过程严格遵守实验动物伦理福利相关规定,批准编号为JNK20210705-1。
选取健康且体重相近的1日龄艾拔益加肉仔鸡120只,随机分为5组,分别为对照组(C组)、攻毒组(CI组)、黄柏提取物治疗组(CIP组)、肠溶缓释黄柏提取物治疗组(CIESP组)和抗生素治疗组(CIA组),每组6个重复,每个重复4只鸡。试验期20 d,其中预试期3 d,正试期17 d[分为攻毒期(4~9日龄)与治疗期(10~20日龄)]。参照Dahiy等[13]的方法并加以改进建立肉仔鸡球虫和产气荚膜梭菌联合感染模型,攻毒期操作如下:4~6日龄时,除C组外其余各组每只鸡每天灌服1 mL鸡球虫卵囊悬液(33 000个孢子囊/mL);7~9日龄时,除C组外其余各组每只鸡每天灌服1 mL产气荚膜梭菌CP4菌液(1×10⁹ CFU/mL),攻毒期C组每只鸡每天灌服1 mL生理盐水。1~9日龄各组均饲喂基础饲粮,10~20日龄,C组和CI组饲喂基础饲粮,CIP组饲喂基础饲粮+0.1 g/kg黄柏提取物,CIESP组饲喂基础饲粮+40 g/kg肠溶缓释黄柏提取物,CIA组饲喂基础饲粮+4 g/kg恩拉霉素预混剂。其中,CIP组与CIESP组饲粮中黄柏提取物活性成分盐酸小檗碱的添加量均为0.1 g/kg。基础饲粮参照《鸡饲养标准》(NY/T 33—2004)[14]配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)

原料 Ingredients 含量 Content 营养水平 Nutrient levels2) 含量 Content
玉米 Corn 54.90 代谢能 ME/(MJ/kg) 12.30
豆粕 Soybean meal 38.00 粗蛋白质 CP 22.04
大豆油 Soybean oil 3.00 钙 Ca 1.01
磷酸氢钙 CaHPO4 1.60 总磷 TP 0.45
石粉 Limestone 1.00 赖氨酸 Lys 1.25
食盐 NaCl 0.30 蛋氨酸 Met 0.42
蛋氨酸 Met 0.10 色氨酸 Try 0.26
赖氨酸 Lys 0.10 非植酸磷 NPP 0.40
预混料 Premix1) 1.00
合计 Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:Fe (as ferrous sulfate) 100 mg,Cu (as copper sulfate) 8 mg,Mn (as manganese sulfate) 120 mg,Zn (as zinc sulfate) 100 mg,Se (as sodium selenite) 0.30 mg,I (as potassium iodide) 0.70 mg,VA 8 000 IU,VD3 2 500 IU,VE 20 IU,VK 0.5 mg,烟酸 nicotinic acid 35 mg,胆碱 choline 1 300 mg,VB12 0.01 mg,泛酸 pantothenic acid 10 mg,叶酸 folic acid 0.55 mg。

2)代谢能、氨基酸和非植酸磷为根据《中国饲料成分及营养价值表(2024年第35版)》所得计算值,粗蛋白质、钙和总磷为实测值。ME, amino acids and NPP were calculated values according to Tables of Feed Composition and Nutritive Values in China (35th edition, 2024), while CP, Ca and TP were measured values.

1.3 饲养管理

饲养试验于2021年7月在吉林省农业科学院动物营养与饲料研究所动物试验场开展。试验肉仔鸡采用笼养方式,自由采食和饮水,实施24 h连续光照。试验第1周鸡舍温度控制在33~35 ℃,之后每周降低2 ℃,试验结束时温度控制在30 ℃左右。

1.4 样品采集

于21日龄晨饲前从每组每个重复中随机选取1只鸡,采用颈静脉放血法屠宰取样,使用分离胶促凝管采集颈静脉血样,室温静置30 min后以1 600×g离心10 min,将血清置于-20 ℃冰箱保存待测;取空肠、回肠及盲肠中段组织,用生理盐水缓慢冲洗清除肠腔内容物,滤纸吸干表面水分后刮取肠道黏膜至1.5 mL无菌离心管中,置于-80 ℃冰箱保存待测;另截取约2 cm回肠肠段,用生理盐水缓慢冲洗清除肠腔内容物,滤纸吸干表面水分后置于4%多聚甲醛固定液中固定;采集约3 g盲肠内容物,装入无菌冻存管后立即放入液氮中速冻,随后转移至-80 ℃冰箱保存待测。

1.5 测定指标

1.5.1 饲粮营养成分

饲粮样品置于55 ℃烘箱中烘至恒重,经研磨后过1 mm筛网,装入自封袋中保存备用。粗蛋白质含量参照GB/T 6432—2018[15]采用凯氏定氮法进行测定,钙含量参照GB/T 13885—2017[16]采用原子吸收光谱法进行测定,总磷含量参照GB/T 6437—2018[17]采用分光光度法进行测定。

1.5.2 生长性能和存活率

于1、4(攻毒前)及21日龄晨间对试验鸡进行空腹称重,称重前禁食12 h,从4日龄起每天记录各组肉仔鸡的投料量和剩料量,计算平均日采食量(ADFI)、4~21日龄平均日增重(ADG)及料重比(F/G)。5日龄起每天晨间换料前观察肉仔鸡健康状况,记录死亡数,计算每组的存活率:
存活率(%)=100×(肉仔鸡总数-肉仔鸡死亡数)/肉仔鸡总数。

1.5.3 抗氧化指标

测定血清及空肠、回肠、盲肠黏膜中总超氧化物歧化酶(T-SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性与丙二醛(MDA)含量。其中,肠道黏膜样品按质量体积比1∶9的比例加入磷酸盐缓冲液(PBS)制成匀浆液,经低温离心10 min后取上清液进行测定。采用考马斯亮蓝法对组织匀浆液中的蛋白含量进行定量。所用试剂盒均购自南京建成生物工程研究所,严格按照试剂盒说明书进行测定。

1.5.4 细胞因子

采用酶联免疫吸附试验(ELISA)测定血清及空肠、回肠、盲肠黏膜中肿瘤坏死因子-α(TNF-α)和白细胞介素-6(IL-6)含量,具体操作委托北京华英生物技术研究所完成。

1.5.5 回肠形态结构

取经4%多聚甲醛固定的回肠组织样品,经包埋、脱蜡至水、染色、脱水、透明、封片等处理后,置于全景扫描影像系统中进行全片扫描,使用IPP6.0图像分析软件对回肠绒毛高度(VH)和隐窝深度(CD)进行量化分析,计算绒毛高度/隐窝深度(VH/CD),具体操作委托辽宁佰昊生物科技有限公司完成。

1.5.6 盲肠微生物多样性

按照天根生化科技(北京)有限公司DNA提取试剂盒说明书步骤,提取盲肠内容物总DNA。通过1.0%琼脂糖凝胶电泳检测DNA完整性,并使用紫外分光光度计(NC2000,Thermo Fisher Scientific,美国)测定DNA浓度。采用细菌16S rRNA基因V3~V4区通用引物进行PCR扩增,引物由上海派森诺生物科技股份有限公司合成,上游引物为338F(5'-ACTCCTACGGGAGGCAGCA-3'),下游引物为806R(5'-GGACTACHVGGGTWTCTAAT-3')。PCR反应体系(25 μL):5×reaction buffer 5 μL,5×GC buffer 5 μL,dNTP(2.5 mmol/L)2 μL,正向引物(10 μmol/L)1 μL,反向引物(10 μmol/L)1 μL,DNA模板2 μL,ddH2O 8.75 μL,Q5 DNA聚合酶0.25 μL。PCR扩增参数:98 ℃预变性2 min;98 ℃变性15 s,55 ℃退火30 s,72 ℃延伸30 s,25~30个循环(循环数根据样本DNA质量适当微调);72 ℃终延伸5 min,10 ℃维持。每组取3个样品进行检测,测序工作委托上海派森诺生物科技股份有限公司完成。
测序完成后,原始序列数据使用cutadapt插件进行引物切割,然后使用DADA2插件对序列进行质量过滤、去噪、合并和嵌合体去除,对高质量序列(相似度97%以上)进行聚类。根据输出的代表序列和操作分类单元(OTU)表,使用R软件包“VennDiagram”生成韦恩图,基于样本在不同测序深度条件下观测到的物种数量绘制稀疏曲线图。利用QIIME2中的扩增子序列变体(ASV)表,计算Alpha多样性指数(Chao1、Shannon、Simpson和Goods_coverage指数),并以箱形图呈现结果;基于加权UniFrac距离进行Beta多样性分析,通过主坐标分析(PCoA)可视化样本间差异;通过群落柱形图展示各组盲肠微生物在门和属水平的优势菌群组成,并对各组微生物组成差异进行分析。

1.6 数据统计与分析

试验原始数据经Excel 2019进行初步整理后,使用SPSS 25.0软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较。结果用“平均值±标准误”表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡生长性能和存活率的影响

表2可知,C组、CI组、CIESP组和CIA组之间各项生长性能指标差异均不显著(P>0.05);CIP组4~21日龄F/G显著高于C组和CIESP组(P<0.05)。
表2 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡生长性能的影响

Table 2 Effects of Phellodendron amurense extract in different dosage forms on growth performance of broilers coinfected with Eimeria and Clostridium perfringens

项目
Items
组别 Groups P
P-value
C CI CIP CIESP CIA
1日龄体重
BW at 1 day of age/g
52.45±1.03 51.60±1.35 50.48±1.27 49.52±1.26 50.21±1.37 0.495
4日龄体重
BW at 4 days of age/g
96.50±3.39 97.13±4.48 96.88±2.41 95.04±2.88 90.54±3.60 0.621
21日龄体重
BW at 21 days of age/g
381.25±22.26 335.77±37.32 358.46±27.37 404.38±37.74 380.41±46.07 0.723
4~21日龄平均日增重
ADG during 4 to 21 days
of age/(g/d)
16.75±1.87 14.04±2.84 15.39±2.96 18.20±3.86 17.05±2.47 0.681
4~21日龄平均日采食量
ADFI during 4 to 21 days
of age/(g/d)
34.92±2.55 33.19±2.28 42.51±3.22 35.64±2.58 38.74±3.13 0.147
4~21日龄料重比
F/G during 4 to
21 days of age
2.08±0.15b 2.36±0.16ab 2.76±0.21a 1.96±0.14b 2.27±0.18ab 0.017

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

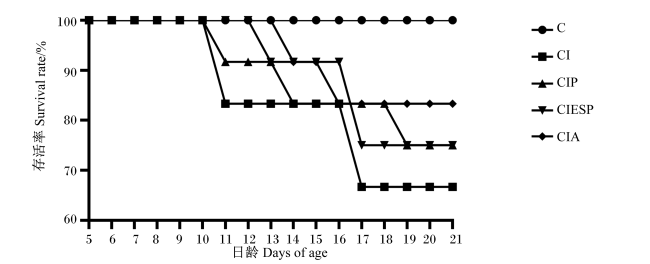
图1可知,C组整个试验期未出现死亡情况,存活率为100%。在联合感染球虫和产气荚膜梭菌后,CI组在11日龄(更换试验饲粮第2天)存活率下降至83%,17日龄下降至67%;经黄柏提取物和抗生素治疗后肉仔鸡存活率有所提升,试验结束时CIP组和CIESP组存活率较CI组提升8%,但较CIA组低,CIA组试验结束时存活率为83%。
图1 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡存活率的影响

C:C组 C group;CI:CI组 CI group;CIP:CIP组 CIP group;CIESP:CIESP组 CIESP group;CIA:CIA组 CIA group。下图同 the same as below。

Fig.1 Effects of Phellodendron amurense extract in different dosage forms on survival rate of broilers coinfected with Eimeria and Clostridium perfringens

2.2 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道抗氧化指标的影响

表3可知,血清中,与C组相比,CI组MDA含量显著升高(P<0.05);与CI组相比,CIP组和CIESP组MDA含量显著降低(P<0.05),GSH-Px活性显著升高(P<0.05);与C组相比,CIP组和CIESP组GSH-Px活性显著升高(P<0.05);CIP组GSH-Px活性显著高于CIESP组(P<0.05),与CIA组差异不显著(P>0.05)。空肠中,CI组与C组之间各项指标差异不显著(P>0.05);与CI组相比,CIP组和CIESP组MDA含量显著降低(P<0.05);CIP组、CIESP组和CIA组之间各项指标差异不显著(P>0.05)。回肠中,与C组相比,CI组MDA含量显著升高(P<0.05);CIP组和CIESP组MDA含量显著低于CI组(P<0.05),且与C组和CIA组差异不显著(P>0.05);CIESP组T-SOD活性极显著高于其余各组(P<0.01),GSH-Px活性显著高于其余各组(P<0.05);与CIP组相比,CIA组T-SOD活性极显著升高(P<0.01)。盲肠中,CI组与C组之间各项指标差异不显著(P>0.05);与CI组相比,CIP组和CIESP组GSH-Px活性显著升高(P<0.05),CIP组和CIESP组GSH-Px活性显著高于C组和CIA组(P<0.05),C组与CIA组之间GSH-Px活性差异不显著(P>0.05)。
表3 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道抗氧化指标的影响

Table 3 Effects of Phellodendron amurense extract in different dosage forms on serum and intestinal antioxidant indicators of broilers coinfected with Eimeria and Clostridium perfringens

项目
Items
组别 Groups P
P-value
C CI CIP CIESP CIA
血清 Serum
丙二醛
MDA/(nmol/mL)
6.69
±0.77b
10.61
±0.64a
6.13
±0.10b
6.58
±0.75b
7.04
±1.25b
0.040
总超氧化物歧化酶
T-SOD/(U/mL)
736.00
±375.26
664.30
±336.38
865.92
±72.56
498.04
±182.35
838.28
±107.12
0.679
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
2 215.00
±35.00c
2 015.00
±215.00c
5 610.00
±60.00a
3 946.00
±256.21b
6 480.00
±390.00a
0.048
空肠 Jejunum
丙二醛
MDA/(nmol/mg prot)
1.23
±0.05a
1.26
±0.01a
0.93
±0.08b
0.70
±0.11c
0.87
±0.10bc
0.026
总超氧化物歧化酶
T-SOD/(U/mg prot)
663.82
±31.33
551.49
±22.60
579.70
±39.77
720.79
±112.89
575.58
±65.51
0.265
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
25.76
±7.09
12.71
±5.04
19.77
±5.67
21.03
±5.57
21.50
±4.41
0.600
回肠 Ileum
丙二醛
MDA/(nmol/mg prot)
1.76
±0.45b
3.21
±0.72a
1.65
±0.20b
1.63
±0.41b
1.54
±0.47b
0.016
总超氧化物歧化酶
T-SOD/(U/mg prot)
446.32
±43.64Cc
390.74
±81.24Cc
514.25
±12.33Cc
844.89
±18.59Aa
680.44
±18.89Bb
0.003
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
18.91
±0.36b
18.21
±1.06b
23.64
±3.61b
36.18
±3.16a
25.35
±1.34b
0.011
盲肠 Cecum
丙二醛
MDA/(nmol/mg prot)
1.34
±0.10
1.57
±0.31
1.32
±0.10
1.10
±0.08
1.14
±0.10
0.266
总超氧化物歧化酶
T-SOD/(U/mg prot)
739.15
±36.81
582.71
±97.54
861.77
±60.66
754.98
±46.28
768.52
±2.09
0.127
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
25.24
±3.74b
20.37
±1.60b
33.99
±0.36a
34.24
±1.47a
23.89
±2.71b
0.030

2.3 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道细胞因子含量的影响

表4可知,血清中,与C组相比,CI组TNF-α含量极显著升高(P<0.01);与C组和CI组相比,CIP组和CIESP组IL-6和TNF-α含量极显著降低(P<0.01),且CIESP组IL-6和TNF-α含量极显著低于CIP组(P<0.01),与CIA组差异不显著(P>0.05)。空肠中,CI组与C组之间各项指标差异不显著(P>0.05);CIESP组IL-6含量极显著低于CI组和C组(P<0.01),CIESP组与CIA组差异不显著(P>0.05)。回肠中,与C组相比,CI组IL-6含量极显著升高(P<0.01);与C组和CI组相比,CIP组和CIESP组IL-6含量极显著降低(P<0.01);CIESP组IL-6和TNF-α含量极显著低于CIP组(P<0.01);CIESP组与CIA组之间各项指标差异不显著(P>0.05)。盲肠中,与C组相比,CI组IL-6含量极显著升高(P<0.01);与CI组相比,CIESP组和CIP组IL-6含量极显著降低(P<0.01),CIESP组TNF-α含量显著降低(P<0.05);CIESP组IL-6含量极显著低于C组(P<0.01);CIESP组与CIA组之间各项指标差异不显著(P>0.05)。
表4 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道细胞因子含量的影响

Table 4 Effects of Phellodendron amurense extract in different dosage forms on serum and intestinal cytokine contents of broilers coinfected with Eimeria and Clostridium perfringens

项目
Items
组别 Groups P
P-value
C CI CIP CIESP CIA
血清 Serum/(pg/mL)
白细胞介素-6
IL-6
159.68±2.92Aa 164.60±4.26Aa 135.21±4.26Bb 80.80±2.11Cc 75.07±1.97Cc <0.001
肿瘤坏死因子-α
TNF-α
66.86±1.05Bb 74.57±3.81Aa 52.58±2.07Cc 36.33±1.07Dd 33.33±1.90Dd <0.001
空肠 Jejunum/(pg/mg prot)
白细胞介素-6
IL-6
22.76±1.27Aa 24.07±2.37Aa 19.35±1.28ABab 14.79±1.32BCbc 12.76±0.69Cc 0.001
肿瘤坏死因子-α
TNF-α
5.43±0.21Aa 6.09±0.84Aa 4.88±0.07ABab 3.69±0.37ABab 3.18±0.30Cc 0.005
回肠 Ileum/(pg/mg prot)
白细胞介素-6
IL-6
22.03±0.49Bb 26.21±2.25Aa 13.64±0.85Cc 7.26±0.47Dd 6.49±0.36Dd <0.001
肿瘤坏死因子-α
TNF-α
3.39±0.14Aa 3.85±0.18Aa 3.08±0.04Aa 2.54±0.08Bb 2.34±0.17Bb <0.001
盲肠 Cecum/(pg/mg prot)
白细胞介素-6
IL-6
13.97±0.38Bb 19.25±1.93Aa 11.03±1.39BCbc 7.57±0.57CDcd 5.16±0.33Dd <0.001
肿瘤坏死因子-α
TNF-α
3.27±0.28ab 3.62±0.45a 3.04±0.14abc 2.60±0.03bc 2.37±0.10c 0.033

2.4 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡回肠形态结构的影响

表5可知,C组与CI组之间回肠VH、CD及VH/CD差异不显著(P>0.05);CIESP组回肠CD显著低于C组(P<0.05);CIA组回肠VH显著低于C组和CIP组(P<0.05),回肠CD显著低于C组、CI组及CIP组(P<0.05)。
表5 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡回肠形态结构的影响

Table 5 Effects of Phellodendron amurense extract in different dosage forms on ileum morphological structure of broilers coinfected with Eimeria and Clostridium perfringens

项目
Items
组别 Groups P
P-value
C CI CIP CIESP CIA
绒毛高度 VH/μm 707.91±58.48a 590.61±8.11ab 729.08±37.55a 609.14±113.74ab 493.70±27.75b 0.039
隐窝深度 CD/μm 157.87±5.86a 148.66±17.07ab 151.35±20.26ab 101.60±12.10bc 90.94±11.96c 0.030
绒毛高度/隐窝深度
VH/CD
4.51±0.49 4.08±0.48 4.93±0.41 5.95±0.41 5.72±1.13 0.354
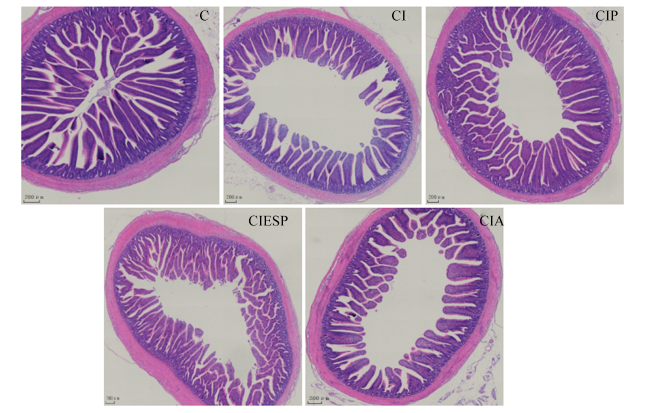
图2可知,C组回肠绒毛排列整齐,肌层薄厚均匀,组织黏膜完整;与C组相比,CI组肌层变薄,肠绒毛稀疏且长短不一;黄柏提取物治疗后肉仔鸡回肠组织形态得到明显改善,肠绒毛排列趋于整齐、分布均匀;而抗生素治疗对肉仔鸡肠道结构没有明显修复效果。
图2 回肠组织形态

Fig.2 Ileum tissue morphology (100×)

2.5 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡盲肠菌群的影响

2.5.1 测序数据及OTU聚类
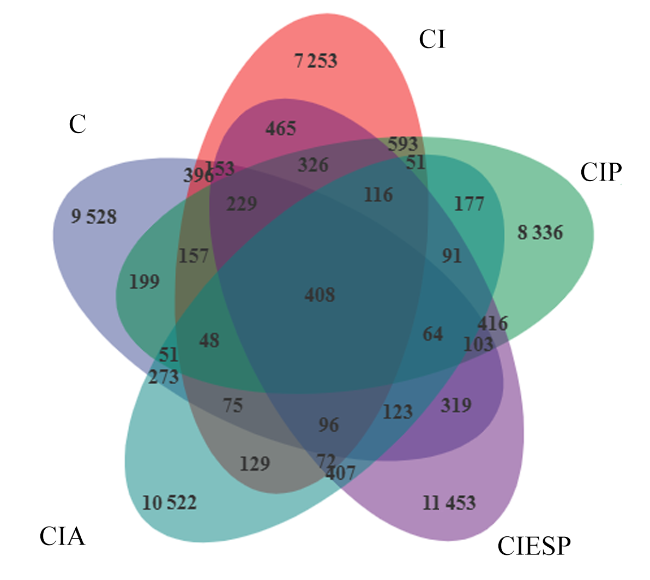
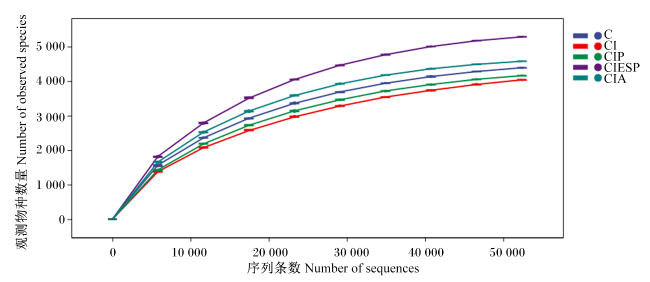
从5组中每组随机选取3份盲肠内容物样品(共15份),测序后获得2 135 206条原始序列,经去噪处理后得到1 920 661条有效序列。对各组样品的OTU数量进行韦恩分析以明确样本间OTU的共有与特有情况,结果表明,5组中共有408个核心OTU,占总OTU的0.86%;C组、CI组、CIP组、CIESP组和CIA组分别特有9 528、7 253、8 336、11 453和10 522个OTU(图3)。观测物种稀疏曲线(图4)结果表明,当测序条数达到40 000条时,曲线逐渐趋于平缓,说明本研究的测序深度已覆盖样本中大部分微生物信息,采样质量符合后续测序与分析的要求。
图3 OTU韦恩图

Fig.3 OTU Venn diagram

图4 观测物种稀疏曲线

Fig.4 Rarefaction curves of observed species

2.5.2 多样性分析

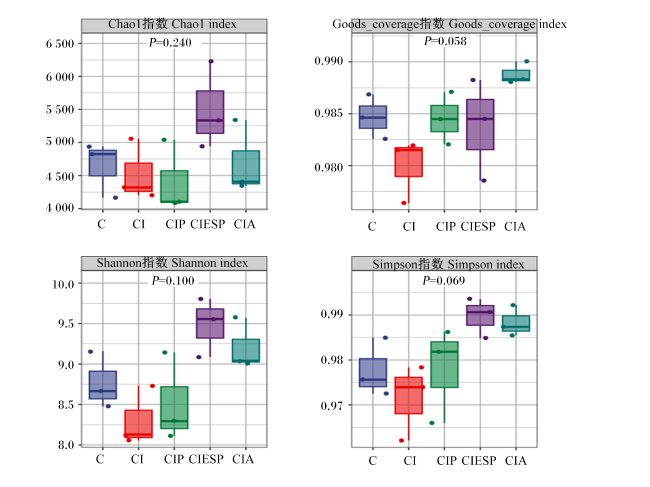
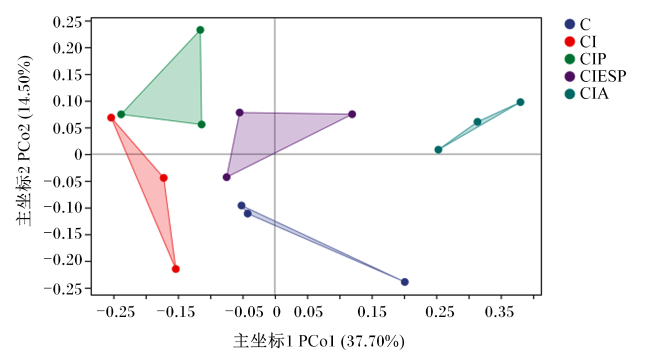
各组盲肠微生物菌群的Alpha多样性分析(图5)结果表明,5组盲肠微生物菌群丰富度和多样性差异不显著(P>0.05)。基于加权Unifrac距离的PCoA(图6)结果表明,5组样品的微生物菌群结构呈现明显分离趋势;其中,CI组和CIP组样本在坐标轴中的投影距离较近,微生物群落组成相似度较高,而C组、CIESP组及CIA组的样本分布相对分散,且CIA组样本与其他各组的分离程度最为明显,菌群结构存在差异。
图5 Alpha多样性分析

Fig.5 Alpha diversity analysis

图6 Beta多样性分析

Fig.6 Beta diversity analysis

2.5.3 物种组成分析

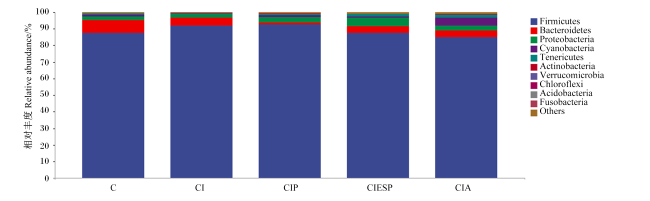
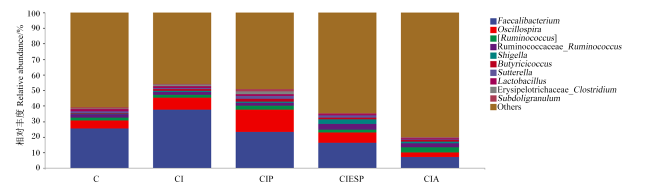
图7可知,在门水平上,厚壁菌门(Firmicutes,相对丰度85.11%~92.81%)和拟杆菌门(Bactroidetes,相对丰度1.12%~7.54%)为各组盲肠微生物优势菌门,占微生物总数的85%以上。由表6可知,CIA组盲肠放线菌门(Actinobacteria)相对丰度极显著高于其余4组(P<0.01)。由图8可知,在属水平上,粪杆菌属(Faecalibacterium,相对丰度7.26%~37.59%)和颤螺旋菌属(Oscillospira,相对丰度3.00%~14.37%)为各组盲肠微生物优势菌属,占微生物总数的10%以上。由表6可知,CIESP组和CIA组盲肠粪杆菌属相对丰度极显著低于CI组(P<0.01),CIESP组盲肠瘤胃球菌科_瘤胃球菌属(Ruminococcaceae_Ruminococcus)相对丰度显著高于C组、CI组和CIP组(P<0.05),CIP组和CIESP组盲肠丁酸球菌属(Butyricicoccus)相对丰度显著高于C组(P<0.05)。
图7 盲肠微生物门水平物种组成

Firmicutes:厚壁菌门;Bacteroidetes:拟杆菌门;Proteobacteria:变形菌门;Cyanobacteria:蓝藻门;Tenericutes:软壁菌门;Actinobacteria:放线菌门;Verrucomicrobia:疣微菌门;Chloroflexi:绿弯菌门;Acidobacteria:酸杆菌门;Fusobacteria:梭杆菌门;Others:其他。

Fig.7 Cecal microbiota composition at phylum level

表6 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡盲肠菌群组成的影响

Table 6 Effects of Phellodendron amurense extract in different dosage forms on cecal microbiota composition of broilers coinfected with Eimeria and Clostridium perfringens

项目
Items
组别 Groups P
P-value
C CI CIP CIESP CIA
门水平 Phylum level
厚壁菌门 Firmicutes 87.53±3.53 92.04±3.17 92.81±1.85 87.55±2.55 85.11±2.77 0.320
拟杆菌门 Bacteroidetes 7.54±2.63 4.48±3.73 1.12±0.44 3.91±1.92 3.96±0.52 0.433
变形菌门 Proteobacteria 2.46±0.25 1.95±0.94 3.10±1.90 5.41±1.52 2.72±0.48 0.344
蓝藻门 Cyanobacteria 0.90±0.34 0.23±0.08 1.26±1.14 0.51±0.17 4.81±2.48 0.131
软壁菌门 Tenericutes 0.71±0.30 0.67±0.19 0.71±0.25 1.37±0.62 1.77±1.33 0.717
放线菌门 Actinobacteria 0.14±0.02Bb 0.13±0.03Bb 0.14±0.02Bb 0.25±0.05Bb 0.44±0.08Aa 0.004
属水平 Genus level
粪杆菌属
Faecalibacterium
25.42±4.20ABab 37.59±0.50Aa 23.16±5.43ABab 16.47±6.60BCbc 7.26±3.26Cc 0.009
颤螺旋菌属
Oscillospira
5.18±0.90 7.57±2.97 14.37±4.54 6.57±1.73 3.00±0.65 0.090
瘤胃球菌属
Ruminococcus
1.93±0.61 1.93±0.42 2.65±0.89 1.84±0.84 3.14±0.86 0.681
瘤胃球菌科_瘤胃球菌属
Ruminococcaceae_
Ruminococcus
1.98±0.28b 1.76±0.16b 1.73±0.34b 3.48±0.51a 2.39±0.44ab 0.035
志贺氏菌属 Shigella 0.55±0.22 0.83±0.51 0.78±0.17 3.01±1.73 1.13±0.52 0.309
丁酸球菌属
Butyricicoccus
0.29±0.06b 1.17±0.38ab 1.99±0.38a 1.25±0.27a 1.10±0.15ab 0.021
萨特氏菌属 Sutterella 1.27±0.18 0.62±0.34 1.84±1.79 1.35±1.28 0.67±0.26 0.899
乳杆菌属 Lactobacillus 1.30±0.32 1.15±0.50 0.91±0.24 0.65±0.12 0.60±0.23 0.467
丹毒丝菌科_梭菌属
Erysipelotrichaceae_
Clostridium
0.39±0.17 0.97±0.75 1.99±0.69 0.23±0.09 0.43±0.20 0.126
罕见小球菌属
Subdoligranulum
0.82±0.43 0.71±0.37 1.33±0.38 0.53±0.21 0.12±0.05 0.191
图8 盲肠微生物属水平物种组成

Faecalibacterium:粪杆菌属;Oscillospira:颤螺旋菌属;[Ruminococcus]:瘤胃球菌属;Ruminococcaceae_Ruminococcus:瘤胃球菌科_瘤胃球菌属;Shigella:志贺氏菌属;Butyricicoccus:丁酸球菌属;Sutterella:萨特氏菌属;Lactobacillus:乳杆菌属;Erysipelotrichaceae_Clostridium:丹毒丝菌科_梭菌属;Subdoligranulum:罕见小球菌属;Others:其他。

Fig.8 Cecal microbiota composition at genus level

3 讨论

3.1 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡生长性能和存活率的影响

产气荚膜梭菌感染肉鸡可引发严重肠道损伤,产生的亚临床感染会导致肉鸡出现厌食、精神萎靡、饲料转化率降低等症状[18]。徐朋涛等[19]研究发现,球虫和产气荚膜梭菌联合感染后肉鸡ADG和ADFI显著降低,F/G显著升高,且饲粮添加单宁酸对感染肉鸡的体增重和采食量无显著改善作用。樊政等[20]同样发现,肉鸡感染产气荚膜梭菌后ADG显著降低,但饲粮添加苯甲酸可显著提高感染肉鸡的ADG。本研究中,各组间体重和ADG虽无显著差异,但CI组肉仔鸡的体重、ADG及ADFI均最低,与上述研究存在差异的原因可能与添加物的种类、剂量、感染流程及试验周期有关。本研究发现,饲喂未包被黄柏提取物组肉仔鸡的F/G为5组中最高;饲喂肠溶缓释黄柏提取物的肉仔鸡ADG虽与C组差异不显著,但相较于CI组有一定改善,且该组F/G最低,与C组差异不显著。这可能与黄柏提取物的剂型有关,相比于未包被的黄柏提取物,肠溶包衣可有效提高黄柏提取物的胃通过率,使更多有效成分作用于肠道后端,进而改善感染肉鸡的生长性能。袁橙等[21]关于球虫和产气荚膜梭菌联合感染构建坏死性肠炎模型的研究指出,适宜的攻毒剂量及攻毒时间有利于肉鸡坏死性肠炎模型的建立;存活率过高或过低均不利于模型构建,存活率维持在80%左右时,既能有效模拟坏死性肠炎的病理特征,又可避免因过度死亡导致的模型不稳定。本研究中,CI组在攻毒后第2天存活率就下降至83%,与上述研究结果相似。但试验结束时CI组、CIP组和CIESP组的存活率均低于80%,这可能与试验周期长短有关,袁橙等[21]的研究在攻毒后第4天即进行屠宰,而本试验攻毒后的治疗周期长达11 d,治疗期间可能因个体差异及对致病菌耐受程度不同,导致肉仔鸡死亡数量增多。

3.2 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道抗氧化指标的影响

T-SOD、GSH-Px活性及MDA含量可在一定程度上反映动物机体的抗氧化能力。机体内超氧化物歧化酶(SOD)先将超氧化物降解为过氧化氢,GSH-Px再将过氧化氢催化为水,进而发挥抗氧化作用;而MDA作为脂质过氧化的内源性标志物,其含量与机体抗氧化能力呈负相关[22]。研究表明,产气荚膜梭菌感染可引发动物机体炎症反应,进而诱发氧化应激[23]。楚玉婷等[24]研究发现,产气荚膜梭菌感染可导致肉鸡空肠黏膜T-SOD活性显著降低。本研究结果表明,CI组血清和回肠MDA含量较C组显著升高,尽管T-SOD和GSH-Px活性与C组差异不显著,但均低于C组,说明球虫和产气荚膜梭菌联合感染可刺激肉鸡产生氧化应激,促使体内MDA含量升高,同时导致T-SOD和GSH-Px活性下降。黄柏提取物具有广谱的抗菌功效,对于治疗动物胃肠道疾病具有良好的作用[10]。相关研究报道,小檗碱可以作为一种抗氧化剂,通过降低MDA生成和提高抗氧化酶活性来防止组织脂质过氧化[25],对肉鸡体内自由基清除和抗氧化能力具有显著的保护效果。本研究中,饲粮添加不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡的抗氧化能力有显著改善作用,从血清抗氧化指标来看,未包被黄柏提取物对感染肉鸡抗氧化能力的提升效果优于肠溶缓释黄柏提取物;而肠道抗氧化指标结果显示,肠溶缓释黄柏提取物的作用效果更优。这一差异可能与黄柏提取物的剂型特性有关,未包被黄柏提取物更易被消化吸收进入血液,而肠溶缓释剂型可使更多有效成分作用于肠道病灶,从而导致2种剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡的抗氧化调控效果存在差异。

3.3 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道细胞因子含量的影响

一般而言,炎症反应是动物机体对病原体、受损细胞、刺激物等所产生的复杂保护性生物反应[26]。细胞因子在炎症反应中具有重要作用,产气荚膜梭菌感染会导致肉鸡机体内IL-6、TNF-α等促炎因子含量升高,同时使抗炎因子含量降低[27]。Collier等[28]报道,球虫和产气荚膜梭菌联合感染提高了肉鸡回肠中白细胞介素-4(IL-4)、白细胞介素-10(IL-10)和干扰素-γ(IFN-γ)等的表达。本研究结果与上述研究结论相符,即球虫和产气荚膜梭菌联合感染后肉仔鸡血清及肠道组织中IL-6、TNF-α的含量显著或极显著升高。黄柏提取物的抗炎功效已得到多数研究证实:何贤辉等[29]研究发现,小檗碱能够抑制淋巴细胞的增殖与分化,抑制TNF-α和白细胞介素-2(IL-2)等细胞因子的产生;Xu等[9]研究发现,黄柏提取物能够降低腹泻小鼠TNF-α、白细胞介素-1α(IL-1α)等促炎因子含量。本研究结果与上述报道相符,饲粮添加未包被黄柏提取物和肠溶缓释黄柏提取物可显著或极显著降低球虫和产气荚膜梭菌联合感染肉仔鸡血清及肠道中IL-6和TNF-α含量。此外,进一步分析显示,饲喂肠溶缓释黄柏提取物肉仔鸡体内促炎因子含量低于饲喂未包被黄柏提取物的肉仔鸡。

3.4 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡回肠形态结构的影响

肠道形态是评估肠道健康状况的重要指标,其中VH和CD可以反映回肠的消化吸收能力。VH越高,表明肠黏膜吸收面积越广、成熟肠上皮细胞数量越多,消化吸收容量越大;反之,VH越低,说明成熟肠上皮细胞数量越少,消化吸收容量越小。而CD越小,意味着肠上皮细胞成熟率越高、分泌功能越强,回肠消化吸收能力越强[30-32]。此外,VH/CD被认为是评价肠道健康状态及上皮细胞修复能力的重要指标。VH/CD越高,通常代表肠道黏膜的结构完整性越好、消化吸收功能越优。研究证实,产气荚膜梭菌感染会导致肉鸡肠道VH/CD降低,导致肠黏膜萎缩[33],进而增加肠上皮通透性、破坏肠道屏障功能,最终引发细菌移位甚至脓毒症[34]。Jayaraman等[35]研究报道,产气荚膜梭菌感染会导致肉鸡肠道组织VH和VH/CD显著降低。Zhao等[36]同样发现,产气荚膜梭菌感染肉鸡回肠CD和VH/CD显著降低。本研究结果与上述报道相符,球虫和产气荚膜梭菌联合感染后,肉仔鸡回肠VH、CD及VH/CD均降低,同时伴随肌层变薄、肠绒毛稀疏且长短不一的形态学改变。Yuan等[37]报道,饮水添加小檗碱可显著提高坏死性肠炎肉鸡十二指肠VH和VH/CD。本研究中,饲粮添加不同剂型黄柏提取物对肉鸡回肠组织损伤具有一定修复作用,且其修复效果优于抗生素。

3.5 不同剂型黄柏提取物对球虫和产气荚膜梭菌联合感染肉仔鸡盲肠菌群的影响

动物肠道微生物群落的形成是一个复杂的过程,动物年龄、饲粮结构、抗生素、营养物质的添加以及肠道健康状态等均会对肠道微生态环境产生影响[38]。Pietruska等[39]关于艾美耳球虫和/或产气荚膜梭菌感染对肉鸡肠道菌群影响的荟萃分析表明,肉鸡肠道菌群Alpha多样性不受病原菌感染的影响;Stanley等[40]也发现,在无诱发因素条件下,产气荚膜梭菌攻毒不会导致肉鸡盲肠菌群Alpha多样性发生显著变化。本研究结果与上述报道一致,即球虫和产气荚膜梭菌联合感染未对肉仔鸡盲肠菌群Alpha多样性造成显著影响。进一步分析显示,CIESP组盲肠微生物群落与CI组和CIP组明显分离,表明黄柏提取物的剂型差异会对肉鸡盲肠菌群结构产生影响。本研究结果表明,CIA组盲肠放线菌门相对丰度较其他组极显著升高,说明抗生素治疗对肉鸡肠道病原菌的防治缺乏宿主专一性,杀灭病原菌的同时也对有益菌产生了影响,从而改变了肉鸡盲肠的微生物群落组成。CIESP组盲肠瘤胃球菌科_瘤胃球菌属和丁酸球菌属相对丰度较其他组有所提高,说明肠溶缓释黄柏提取物的添加对肉仔鸡盲肠菌群组成产生了有益影响。Fasina等[41]研究发现,肉鸡经产气荚膜梭菌感染后肠道梭菌属相对丰度显著升高。本研究中,球虫和产气荚膜梭菌联合感染对肉仔鸡盲肠丹毒丝菌科_梭菌属(Erysipelotrichaceae_Clostridium)相对丰度未产生显著影响,但CI组该菌属相对丰度高于C组;CIP组该菌属相对丰度高于C组和CI组;而CIESP组该菌属相对丰度低于其他各组,但差异不显著。组间差异不显著的原因可能与样本特异性、攻毒剂量、治疗周期等多种因素有关。

4 结论

球虫和产气荚膜梭菌联合感染会降低肉仔鸡抗氧化能力,提高促炎因子含量,破坏回肠形态结构。饲粮添加肠溶缓释黄柏提取物能够有效降低球虫和产气荚膜梭菌联合感染肉仔鸡促炎因子含量,修复回肠受损组织,并提升机体抗氧化能力,且其治疗效果优于未包被黄柏提取物。
[1]
SHOJADOOST B, VINCE A R, PRESCOTT J F. The successful experimental induction of necrotic enteritis in chickens by Clostridium perfringens:a critical review[J]. Veterinary Research, 2012, 43(1):74.

DOI

[2]
MCDEVITT R M, BROOKER J D, ACAMOVIC T, et al. Necrotic enteritis;a continuing challenge for the poultry industry[J]. World’s Poultry Science Journal, 2006, 62(2):221-247.

DOI

[3]
LEE K W, LILLEHOJ H S, JEONG W, et al. Avian necrotic enteritis:experimental models,host immunity,pathogenesis,risk factors,and vaccine development[J]. Poultry Science, 2011, 90(7):1381-1390.

DOI

[4]
VAN IMMERSEEL F, ROOD J I, MOORE R J, et al. Rethinking our understanding of the pathogenesis of necrotic enteritis in chickens[J]. Trends in Microbiology, 2009, 17(1):32-36.

DOI PMID

[5]
VAN DER SLUIS W. Clostridial enteritis is an often underestimated problem[J]. World’s Poultry Science Journal, 2000, 16:42-43.

[6]
CALY D L, D’INCA R, AUCLAIR E, et al. Alternatives to antibiotics to prevent necrotic enteritis in broiler chickens:a microbiologist’s perspective[J]. Frontiers in Microbiology, 2015, 6:1336.

[7]
刘天旭, 杨晓洁, 徐建, 等. 畜禽养殖抗生素替代物研究进展[J]. 家畜生态学报, 2021, 42(7):1-7.

LIU T X, YANG X J, XU J, et al. Research progress on antibiotic substitutes in livestock and poultry[J]. Acta Ecologiae Animalis Domastici, 2021, 42(7):1-7. (in Chinese)

[8]
刘静茹, 姚姗姗, 王文静, 等. 中药黄柏抗炎作用机制的网络药理学分析[J]. 黑龙江畜牧兽医, 2020(20):117-121,127,161.

LIU J R, YAO S S, WANG W J, et al. Network pharmacology analysis of anti-inflammatory mechanism of Phellodendron chinense Schneid.[J]. Heilongjiang Animal Science and Veterinary Medicine, 2020(20):117-121,127,161. (in Chinese)

[9]
XU B Y, YAN Y Q, HUANG J C, et al. Cortex Phellodendri extract’s anti-diarrhea effect in mice related to its modification of gut microbiota[J]. Biomedicine & Pharmacotherapy, 2020, 123:109720.

DOI

[10]
SUN H L, WANG N J, CANG Z, et al. Modulation of microbiota-gut-brain axis by berberine resulting in improved metabolic status in high-fat diet-fed rats[J]. Obesity Facts, 2016, 9(6):365-378.

DOI PMID

[11]
TSUJII T, KAWADA-MATSUO M, MIGITA H, et al. Antibacterial activity of Phellodendron bark against Streptococcus mutans[J]. Microbiology and Immunology, 2020, 64(6):424-434.

DOI

[12]
杨仕群, 阳刚, 舒刚. 黄连提取物对高饲养密度下肉鸡生长性能、血清生化指标及肠道微生物的影响[J]. 中国饲料, 2021(6):41-45.

YANG S Q, YANG G, SHU G. Effects of Coptis extracts on growth performance,serum biochemistry and intestinal microorganisms of broilers under high feeding density[J]. China Feed, 2021(6):41-45. (in Chinese)

[13]
DAHIY J P, HIEGKER D, WILKIE D C, et al. Dietary glycine concentration affects intestinal Closridium perfringens and lactobacilli populations in broiler chickens[J]. Poultry Science, 2005, 84(12):1875-1885.

DOI

[14]
中华人民共和国农业部. 鸡饲养标准:NY/T33—2004[S]. 北京: 中国农业出版社, 2004.

Ministry of Agriculture of the People’s Republic of China. Feedingstandardofchicken:NY/T33—2004[S]. Beijing: China Agricultural Press, 2004. (in Chinese).

[15]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determinationofcrudeproteininfeeds-Kjeldahlmethod:GB/T6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[16]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中总磷的测定分光光度法:GB/T6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determinationofphosphorusinfeeds-spectrophotometry:GB/T6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[17]
中华人民共和国国家质量监督检验检疫总局. 饲料中钙、铜、铁、镁、锰、钾、钠和锌含量的测定原子吸收光谱法:GB/T13885—2017[S]. 北京: 中国标准出版社, 2017.

National Feed Industry Standardization Technical Committee. Determinationofthecontentsofcalcium,copper,iron,magnesium,manganese,potassium,sodiumandzincinfeeds-methodusingatomicabsorptionspectrometry:GB/T13885—2017[S]. Beijing: Standards Press of China, 2017. (in Chinese)

[18]
LOVLAND A, KALDHUSDAL M. Severely impaired production performance in broiler flocks with high incidence of Clostridium perfringens-associated hepatitis[J]. Avian Pathology, 2001, 30(1):73-81.

DOI

[19]
徐朋涛, 陈亚兵, 陈靖, 等. 单宁酸对球虫和产气荚膜梭菌混合感染肉鸡生长性能、抗氧化能力和肠道形态结构的影响[J]. 动物营养学报, 2023, 35(11):7036-7048.

DOI

XU P T, CHEN Y B, CHEN J, et al. Effects of tannic acid on growth performance,antioxidant capacity and intestinal morphology of broilers co-infected with coccidia and Clostridium perfringens[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):7036-7048. (in Chinese)

[20]
樊政, 刘远斌, 张翘楚, 等. 苯甲酸对球虫和产气荚膜梭菌联合感染肉鸡生长性能、免疫功能及肠道健康的影响[J]. 动物营养学报, 2023, 35(7):4387-4401.

DOI

FAN Z, LIU Y B, ZHANG Q C, et al. Effects of benzoic acid on growth performance,immune function and intestinal health of broilers coinfected with Eimeria and Clostridium perfringens[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4387-4401. (in Chinese)

[21]
袁橙, 袁月, 张清正, 等. 巨型艾美耳球虫与产气荚膜梭菌共感染致鸡坏死性肠炎模型的评价[J]. 畜牧兽医学报, 2025, 56(8):4120-4128.

DOI

YUAN C, YUAN Y, ZHANG Q Z, et al. Evaluation of a necrotic enteritis model induced by co-infection with Eimeria maxima and Clostridium perfringens[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(8):4120-4128. (in Chinese)

[22]
BLOKHINA O, VIROLAINEN E, FAGERSTEDT K V. Antioxidants,oxidative damage and oxygen deprivation stress:a review[J]. Annals of Botany, 2003, 91(2):179-194.

DOI

[23]
孙秋娟, 安然, 呙于明. 复合酶制剂及植物精油对感染产气荚膜梭菌肉仔鸡抗氧化及免疫指标的影响[J]. 山西农业大学学报(自然科学版), 2019, 39(6):95-99.

SUN Q J, AN R, GUO Y M. Multi-enzyme complex and essential oil altered antioxidant capacity and immunity of chicks infested by Clostridium perfringens[J]. Journal of Shanxi Agricultural University (Natural Science Edition), 2019, 39(6):95-99. (in Chinese)

[24]
楚玉婷, 朱阳华, 谢长清, 等. 枯草芽孢杆菌复合微生物制剂对鸡坏死性肠炎的预防效果[J]. 华中农业大学学报, 2024, 43(3):275-281.

CHU Y T, ZHU Y H, XIE C Q, et al. Preventive effect of Bacillus subtilis compound microbial preparation on chicken necrotic enteritis[J]. Journal of Huazhong Agricultural University, 2024, 43(3):275-281. (in Chinese)

[25]
YANG L, LIU G, LIANG X R, et al. Effects of berberine on the growth performance,antioxidative capacity and immune response to lipopolysaccharide challenge in broilers[J]. Animal Science Journal, 2019, 90(9):1229-1238.

DOI

[26]
OH S, LILLEHOJ H S, LEE Y, et al. Dietary antibiotic growth promoters down-regulate intestinal inflammatory cytokine expression in chickens challenged with LPS or co-infected with Eimeria maxima and Clostridium perfringens[J]. Frontiers in Veterinary Science, 2019, 6:420.

DOI

[27]
FASINA Y O, LILLEHOJ H S. Characterization of intestinal immune response to Clostridium perfringens infection in broiler chickens[J]. Poultry Science, 2019, 98(1):188-198.

DOI

[28]
COLLIER C T, HOFACRE C L, PAYNE A M, et al. Coccidia-induced mucogenesis promotes the onset of necrotic enteritis by supporting Clostridium perfringens growth[J]. Veterinary Immunology and Immunopathology, 2008, 122(1/2):104-115.

DOI

[29]
何贤辉, 曾耀英, 徐丽慧, 等. 黄连素对T淋巴细胞活化和增殖的抑制作用[J]. 中国病理生理杂志, 2002, 18(10):1183-1186.

HE X H, ZENG Y Y, XU L H, et al. Inhibitory effect of berberine on the activation and proliferation of T lymphocytes[J]. Chinese Journal of Pathophysiology, 2002, 18(10):1183-1186. (in Chinese)

[30]
石琳, 张少成, 陈广信, 等. 不同营养水平饲粮添加酵母浓缩物对罗斯肉鸡生长性能、肠道消化酶活性及肠黏膜组织结构的影响[J]. 中国兽医学报, 2018, 38(1):201-205.

SHI L, ZHANG S C, CHEN G X, et al. Effects of yeast concentrate supplement in difference nutrition level dietary on growth performance,digestive enzyme activity and intestinal mucosal structure of Ross broilers[J]. Chinese Journal of Veterinary Science, 2018, 38(1):201-205. (in Chinese)

[31]
METZLER-ZEBELI B U, LAWLOR P G, MAGOWAN E, et al. Finishing pigs that are divergent in feed efficiency show small differences in intestinal functionality and structure[J]. PLoS One, 2017, 12(4):e0174917.

DOI

[32]
CHAE S H, JEONG I H, CHOI D H, et al. Growth-inhibiting effects of Coptisjaponica root-derived isoquinoline alkaloids on human intestinal bacteria[J]. Journal of Agricultural and Food Chemistry, 1999, 47(3):934-938.

DOI

[33]
LIU D, GUO S S, GUO Y M. Xylanase supplementation to a wheat-based diet alleviated the intestinal mucosal barrier impairment of broiler chickens challenged by Clostridium perfringens[J]. Avian Pathology, 2012, 41(3):291-298.

DOI

[34]
SUN X Y, SPENCER A U, YANG H, et al. Impact of caloric intake on parenteral nutrition-associated intestinal morphology and mucosal barrier function[J]. Journal of Parenteral and Enteral Nutrition, 2006, 30(6):474-479.

DOI PMID

[35]
JAYARAMAN S, THANGAVEL G, KURIAN H, et al. Bacillus subtilis PB6 improves intestinal health of broiler chickens challenged with Clostridium perfringens-induced necrotic enteritis[J]. Poultry Science, 2013, 92(2):370-374.

DOI

[36]
ZHAO Y, ZENG D, WANG H S, et al. Dietary probiotic Bacillus licheniformis H2 enhanced growth performance,morphology of small intestine and liver,and antioxidant capacity of broiler chickens against Clostridium perfringens-induced subclinical necrotic enteritis[J]. Probiotics and Antimicrobial Proteins, 2020, 12(3):883-895.

DOI

[37]
YUAN L, LI M J, QIAO Y Y, et al. The impact of berberine on intestinal morphology,microbes,and immune function of broilers in response to necrotic enteritis challenge[J]. BioMed Research International, 2021, 2021(1):1877075.

DOI

[38]
GONG J H, SI W D, FORSTER R J, et al. 16S rRNA gene-based analysis of mucosa-associated bacterial community and phylogeny in the chicken gastrointestinal tracts:from crops to ceca[J]. FEMS Microbiology Ecology, 2007, 59(1):147-157.

DOI

[39]
PIETRUSKA A, BORTOLUZZI C, HAUCK R. A Meta-analysis of the effect of Eimeria spp. and/or Clostridium perfringens infection on the microbiota of broiler chickens[J]. Poultry Science, 2023, 102(6):102652.

DOI

[40]
STANLEY D, WU S B, RODGERS N, et al. Differential responses of cecal microbiota to fishmeal,Eimeria and Clostridium perfringens in a necrotic enteritis challenge model in chickens[J]. PLoS One, 2014, 9(8):e104739.

DOI

[41]
FASINA Y O, NEWMAN M M, STOUGH J M, et al. Effect of Clostridium perfringens infection and antibiotic administration on microbiota in the small intestine of broiler chickens[J]. Poultry Science, 2016, 95(2):247-260.

DOI

Outlines

/