RESEARCH PAPER

Effects of Supplementing Slow-Release Urea in a Low-Protein Diet on Growth Performance, Serum Biochemical Indices, Rumen Fermentation Parameters and Microflora of Beef Cattle

  • ZENG Yu , 1 ,
  • ZHOU Jia 1, * ,
  • HAN Qiang 2 ,
  • WANG Gaofu 1 ,
  • ZHANG Peng 3 ,
  • ZHANG Li 1 ,
  • FU Lin 1 ,
  • HU Rui , 2, ** ,
  • DONG Xianwen , 1, **
Expand
  • 1 Chongqing Academy of Animal Sciences, Chongqing 402460, China
  • 2 Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
  • 3 Zhongxian Animal Husbandry Development Center, Chongqing 404300, China
**HU Rui, associate professor, E-mail: ;
DONG Xianwen, professor, E-mail:

*Contributed equally

Received date: 2025-08-28

  Online published: 2026-03-16

Abstract

This experiment aimed to investigate the effects of low-protein diet supplemented with slow-release urea on the growth performance, serum biochemical indices, rumen fermentation parameters and microflora of beef cattle. Eighteen Simmental crossbred bulls with similar body weight [(521.86±22.86) kg] and in good health were selected and randomly divided into 3 groups, with 6 replicates in each group and 1 bull per replicate. The control group (CON group) was fed a basal diet with a protein level of 12.50%, the low-protein group (LP group) received a low-protein diet with the protein level reduced to 9.50%, and the slow-release urea group (SRU group) was fed a diet formulated based on the LP group diet, where 0.6% slow-release urea was used to iso-nitrogenously replace part of the feed ingredients, restoring the protein level to 12.50%, which was consistent with the CON group diet. The experiment included a 15-day adaptation period followed by a 35-day experimental period. The results showed as follows: 1) there were no significant difference in the average daily gain, dry matter intake, and feed-to-gain ratio of beef cattle among the groups (P>0.05). 2) The content of serum urea nitrogen in the LP group was significantly lower than that in the CON and SRU groups (P<0.05). 3) Regarding rumen fermentation parameters, the ammonia nitrogen (NH3-N) content in the SRU group was significantly higher than that in the CON and LP groups (P<0.05); the proportion of butyrate in the SRU group was significantly higher than that in the LP group (P<0.05); the microbial protein (MCP) content and the proportion of isobutyrate in the LP group were significantly lower than those in the CON and SRU groups (P<0.05). 4) There were no significant differences in rumen microbial diversity among the groups (P>0.05). At the phylum level, Bacillota and Bacteroidetes were the dominant phyla across all groups, the relative abundance of Patescibacteria was significantly higher in the LP group than in the CON and SRU groups (P<0.05). At the genus level, dominant genera of all groups were Xylanobacter, Rikenellaceae_RC9_gut_group and norank_f__F082, the relative abundance of NK4A214_group in the LP group was significantly lower than that in the CON and SRU groups (P<0.05), and the relative abundance of Lachnospiraceae_NK3A20_group in the CON group was significantly higher than that in the LP and SRU groups (P<0.05). Correlation analysis revealed that the relative abundance of the Lachnospiraceae_NK3A20_group in the rumen showed an extremely significant positive correlation with MCP content (r=0.611, P=0.007), and showed a significant positive correlation with the proportion of isobutyrate (r=0.520, P=0.027). In conclusion, under the conditions of this experiment, reducing dietary protein level altered the relative abundance of certain rumen bacteria in beef cattle, leading to decreased serum UN content and reduced rumen NH3-N and MCP contents, as well as changes in the proportions of butyrate and isobutyrate. Supplementation with slow-release urea can ameliorate these effects without negatively impacting the health and growth performance of beef cattle.

Cite this article

ZENG Yu , ZHOU Jia , HAN Qiang , WANG Gaofu , ZHANG Peng , ZHANG Li , FU Lin , HU Rui , DONG Xianwen . Effects of Supplementing Slow-Release Urea in a Low-Protein Diet on Growth Performance, Serum Biochemical Indices, Rumen Fermentation Parameters and Microflora of Beef Cattle[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 2042 -2055 . DOI: 10.12418/CJAN2026.164

畜牧业的快速发展使得蛋白质饲料原料短缺成为一个全球性难题。我国对此类原料进口依赖度高,且价格波动剧烈,这已成为制约我国养殖业高质量发展、阻碍畜牧业提质增效的重要瓶颈。因此,寻找可替代豆粕的蛋白质饲料显得尤为迫切。已有研究显示,适当降低反刍动物饲粮蛋白质水平,有助于提高氮利用率、减少氮排放、缓解环境压力并降低饲料成本[1]。反刍动物瘤胃内含有丰富的微生物,能够高效地将饲粮中的非蛋白氮转化为微生物蛋白(MCP),供宿主利用[2-3]。然而,降低饲粮蛋白质水平会直接影响瘤胃中微生物生长和氨的含量[4]。通过优化饲粮蛋白质结构或补充非蛋白氮,可促进MCP合成,维持瘤胃健康[5]
尿素因其成本低、来源广、含氮量高及瘤胃降解率高等特点,是反刍动物常用的非蛋白氮来源[6]。但尿素在瘤胃中往往水解过快,导致氨生成速度超过碳水化合物的发酵速率,造成瘤胃内氨积累与可发酵碳水化合物供应不同步[7],引起能氮释放失衡。这不仅会降低MCP合成效率和氮利用效率,还可能增加瘤胃氨中毒风险,导致氮源浪费和环境污染[8]。缓释尿素可有效延缓尿素在瘤胃中的降解速率,提高氮利用效率并促进瘤胃微生物的生长。Wang等[5]在泌乳奶牛低蛋白质饲粮中分别添加尿素和硝酸盐,发现硝酸盐替代尿素可促进氨向MCP的整合,并将发酵过程中产生的电子转移至丙酸合成途径,从而提高产奶性能。Fan等[9]评估了聚合物包被尿素和糊化淀粉尿素这2种缓释尿素替代豆粕对安格斯母牛的影响,发现缓释尿素可调控瘤胃内部分微生物的相对丰度,提高挥发性脂肪酸的含量,改善饲料转化率,在保证生产性能的同时降低了对豆粕的依赖。Cherdthong等[10]研究表明,在泰国本地肉牛饲粮中添加180 g/kg的尿素-硫酸钙混合物(U-CaS)可提高采食量和氮利用率,且不影响肉牛的血液指标。朱志宏[11]研究表明,在泌乳奶牛饲粮中添加0.5%~1.0%的缓释尿素,能有效促进瘤胃发酵、提升营养物质利用效率,并对机体代谢、肝肾功能及抗氧化能力的改善产生积极作用,且对其生产性能基本无影响。
目前,缓释尿素作为非蛋白氮添加剂已被广泛研究并应用于反刍动物饲粮中,其作用效果可能与添加剂量、缓释方式及饲喂阶段等有关。本试验旨在降低肉牛饲粮蛋白质水平的同时补充缓释尿素,研究其对肉牛生长性能、血清生化指标、瘤胃发酵参数及微生物区系的影响,为肉牛低蛋白质饲粮配制技术提供数据支撑和理论依据。

1 材料与方法

1.1 试验材料

本试验所用缓释尿素为蛋黄色颗粒状,含氮量≥38%,蛋白质当量≥238%,由上海美农生物科技股份有限公司提供。

1.2 试验设计

本研究的所有试验程序和动物试验方案均已获得重庆市畜牧科学院动物实验伦理委员会的批准(批准号:XKY-20231201)。
采用单因素随机试验设计,将18头体重[(521.86±22.86) kg]相近、健康状况良好的西门塔尔杂交公牛随机分为3组,每组6个重复,每个重复1头牛。对照组(CON组)饲喂蛋白质水平为12.50%的基础饲粮;低蛋白质组(LP组)饲喂蛋白质水平降至9.50%的低蛋白质饲粮;缓释尿素组(SRU组)饲粮是以LP组饲粮配方为基础,通过添加0.6%缓释尿素等氮替代部分饲料原料,将蛋白质水平调整至12.50%,与CON组饲粮保持一致。试验共持续50 d,其中预试期15 d,正试期35 d。

1.3 试验饲粮

试验饲粮的配制参照《肉牛饲养标准》(NY/T 815—2004)[12],由精料和粗料按60:40混合配制成全混合日粮(TMR),粗料为皇竹草青贮和干稻草,一次性备齐试验所需量,统一存放备用。试验饲粮组成及营养水平见表1
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis)

项目
Items
组别 Groups
CON LP SRU
原料 Ingredients
玉米 Corn 39.96 40.98 43.20
麦麸 Wheat bran 3.60 13.20 2.88
豆粕 Soybean meal 3.00 0.60
棉籽粕 Cottonseed meal 3.84 0.84 3.66
菜籽粕 Rapeseed meal 6.00 0.60 6.00
磷酸氢钙 CaHPO4 0.18 0.06
缓释尿素 Slow-release urea 0.60
大豆油 Soybean oil 0.60 0.60 0.60
预混料 Premix1) 3.00 3.00 3.00
皇竹草青贮Pennisetum sinese Roxb silage 30.00 30.00 30.00
干稻草 Straw hay 10.00 10.00 10.00
合计 Total 100.00 100.00 100.00
营养水平 Nutrient levels2)
综合净能 NEmf/(MJ/kg) 5.98 5.97 5.97
粗蛋白质 CP 12.54 9.52 12.51
粗脂肪 EE 3.33 3.59 3.40
粗纤维 CF 20.84 23.40 23.14
粗灰分 Ash 4.77 4.51 4.57
中性洗涤纤维 NDF 32.85 34.73 32.59
酸性洗涤纤维 ADF 19.76 19.21 19.39
钙 Ca 0.65 0.64 0.65
磷 P 0.52 0.53 0.51

1)预混料为每千克饲粮提供The premix provided the following per kg of diets:VA 3 600 IU,VD 360 IU,VE 10 IU,Cu (as copper sulfate) 6 mg,Fe (as ferrous sulfate) 48 mg,Mn (as manganese sulfate) 36 mg,Zn (as zinc sulfate) 48 mg,I (as potassium iodide) 0.36 mg,Se (as sodium selenite) 0.12 mg,Co (as cobalt chloride) 0.2 mg。

2)综合净能为计算值,其他营养水平为实测值。NEmf was a calculated value, while the other nutrient levels were measured values.

1.4 饲养管理

试验开始前,做好圈舍清洁和消毒等准备工作。试验期间每头牛采用单栏拴系饲养,统一驱虫,每7 d消毒1次,由专人管理,保证牛舍清洁卫生。每天饲喂2次(07:30和16:30),自由采食,自由饮水。

1.5 测定指标及方法

1.5.1 饲粮营养水平

饲粮中粗蛋白质、粗灰分、粗脂肪、粗纤维、钙和磷含量分别参照GB/T 6432—2018、GB/T 6438—2007、GB/T 6433—2006、GB/T 6434—2022、GB/T 6436—2018和GB/T 6437—2018进行测定,中性洗涤纤维和酸性洗涤纤维含量参照Van Soest等[13]的方法进行测定,综合净能根据《肉牛饲养标准》(NY/T 815—2004)[12]计算得出。

1.5.2 生长性能

试验开始和结束当天晨饲前进行空腹称重,分别记录为初重和末重;试验期间记录每天的投喂量和剩余量,计算平均日增重、干物质采食量和料重比。

1.5.3 血清生化指标

试验结束当天,通过颈静脉采血20 mL,置于采血管中,采血完成后立即进行离心(4 ℃,1 704×g,10 min),取上清液分装于2 mL EP管中,-80 ℃保存待测。使用BC-240VET型全自动生化分析仪(深圳迈瑞动物医疗科技股份有限公司)测定血清生化指标,包括谷丙转氨酶(ALT)、谷草转氨酶(AST)、谷氨酰氨基转移酶(GGT)、碱性磷酸酶(ALP)活性与总蛋白(TP)、白蛋白(ALB)、尿素氮(UN)、高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)、葡萄糖(GLU)含量。

1.5.4 瘤胃发酵参数及微生物区系

试验结束当天,利用口腔导管采集瘤胃液,弃去最初的50~100 mL(避免唾液的影响),再采集80 mL瘤胃液,立即采用便携式pH计(REX PHS-3C,上海雷磁科学仪器股份有限公司)测定瘤胃液pH,然后分装于15 mL离心管和5 mL冻存管中,15 mL离心管-20 ℃保存,用于氨态氮(NH3-N)、MCP和挥发性脂肪酸(VFA)含量的测定;5 mL冻存管立即投入液氮中保存,用于微生物群落多样性的测定。
瘤胃中NH3-N含量采用比色法[14]测定,MCP含量采用考马斯亮蓝法[15]测定,VFA含量采用气相色谱法[16]测定,并计算总挥发性脂肪酸(TVFA)含量以及TVFA中各VFA比例与乙丙比。
根据E.Z.N.A.® Soil DNA Kit (Omega Bio-Tek,美国)说明书进行微生物群落总基因组DNA抽提,使用1%的琼脂糖凝胶电泳检测抽提的基因组DNA的质量,使用NanoDrop2000测定DNA浓度和纯度。用338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')引物对16S rRNA基因V3~V4可变区进行PCR扩增,PCR反应体系为:5×TransStart FastPfu缓冲液4 μL,2.5 mmol/L dNTPs 2 μL,上游引物(5 μmol/L)0.8 μL,下游引物(5 μmol/L)0.8 μL,TransStart FastPfu DNA聚合酶0.4 μL,模板DNA 10 ng,ddH2O补足至20 μL。使用2%琼脂糖凝胶回收PCR产物,利用DNA凝胶回收纯化试剂盒(PCR Clean-Up Kit,上海逾华生物医药有限公司)进行回收产物纯化,并用Qubit 4.0 (Thermo Fisher Scientific,美国)对回收产物进行定量检测。使用NEXTFLEX® Rapid DNA-Seq Kit对纯化后的PCR产物进行建库:1)接头链接;2)使用磁珠筛选去除接头自连片段;3)利用PCR扩增进行文库模板的富集;4)磁珠回收PCR产物得到最终的文库。利用Illumina NextSeq 2000平台进行测序(由上海美吉生物医药科技有限公司完成)。
使用fastp(https://github.com/OpenGene/fastp,version 0.19.6)软件对双端原始测序序列进行质控,使用FLASH(http://www.cbcb.umd.edu/software/flash,version 1.2.11)软件进行拼接,使用Qiime2流程中的DADA2插件对质控拼接之后的优化序列进行降噪处理。降噪处理之后的序列通常被称为扩增子序列变体(ASVs)。去除所有样品中注释到叶绿体和线粒体的序列。为了尽量减少测序深度对后续Alpha多样性和Beta多样性数据分析的影响,将所有样本序列数进行抽平,抽平后每个样本的平均序列覆盖度仍可达99.8%。基于Sliva 16S rRNA基因数据库(v138),使用Qiime2中的分类器对ASVs进行物种分类学分析。

1.6 数据分析

试验数据通过Excel 2016整理后,使用SPSS 24.0进行单因素方差分析,并采用Duncan氏法进行组间多重比较。结果用平均值表示,变异程度用均值标准误(SEM)表示。P<0.05表示差异显著,0.05<P<0.10表示差异有显著趋势。韦恩(Venn)图、主坐标分析(PCoA)图、属水平细菌相对丰度与瘤胃发酵参数的相关关系图的绘制均在美吉生物云平台(https://cloud.majorbio.com)进行。

2 结果与分析

2.1 低蛋白质饲粮中添加缓释尿素对肉牛生长性能的影响

表2可知,与CON组相比,LP组的ADG和DMI降低,但差异均不显著(P>0.05);各组间F/G无显著差异(P>0.05),从数据上看,表现为CON组<SRU组<LP组。
表2 低蛋白质饲粮中添加缓释尿素对肉牛生长性能的影响

Table 2 Effects of supplementing slow-release urea in a low-protein diet on growth performance of beef cattle

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON LP SRU
初重 IBW/kg 524.17 520.92 520.5 5.388 0.960
末重 FBW/kg 574.58 569.83 572.08 6.011 0.955
平均日增重 ADG/(g/d) 1 440.48 1 350.00 1 473.81 43.965 0.798
干物质采食量 DMI/(kg/d) 12.12 12.05 12.44 0.109 0.381
料重比 F/G 8.48 8.88 8.52 0.263 0.806

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 低蛋白质饲粮中添加缓释尿素对肉牛血清生化指标的影响

表3可知,LP组血清UN含量显著低于CON组和SRU组(P<0.05),CON组和SRU组无显著差异(P>0.05);其他血清生化指标各组间均无显著差异(P>0.05)
表3 低蛋白质饲粮中添加缓释尿素对肉牛血清生化指标的影响

Table 3 Effects of supplementing slow-release urea in a low-protein diet on serum biochemical indexes of beef cattle

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON LP SRU
谷丙转氨酶 ALT/(U/L) 32.50 38.67 34.33 2.232 0.168
谷草转氨酶 AST/(U/L) 96.67 107.67 90.33 5.414 0.105
谷氨酰氨基转移酶 GGT/(U/L) 21.50 23.50 23.17 1.673 0.671
碱性磷酸酶 ALP/(U/L) 209.17 267.83 221.17 28.275 0.328
总蛋白 TP/(g/L) 72.37 69.68 72.40 1.159 0.198
白蛋白 ALB/(g/L) 35.73 35.82 35.67 0.985 0.994
尿素氮 UN/(mmol/L) 4.72a 3.66b 4.64a 0.147 <0.001
高密度脂蛋白胆固醇 HDL-C/(mmol/L) 2.01 2.30 2.08 0.105 0.158
低密度脂蛋白胆固醇 LDL-C/(mmol/L) 0.75 0.84 0.68 0.089 0.471
葡萄糖 GLU/(mmol/L) 4.06 4.08 4.12 0.151 0.965

2.3 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃发酵参数的影响

表4可知,SRU组瘤胃中NH3-N含量显著高于CON组和LP组(P<0.05);SRU组瘤胃中丁酸比例显著高于LP组(P<0.05),与CON组无显著差异(P>0.05);LP组瘤胃中MCP含量和异丁酸比例显著低于CON组和SRU组(P<0.05)。
表4 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃发酵参数的影响

Table 4 Effects of supplementing slow-release urea in a low-protein diet on ruminal fermentation parameters of beef cattle

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON LP SRU
pH 6.71 6.69 6.72 0.023 0.788
氨态氮 NH3-N/(μg/mL) 26.37b 23.33b 33.95a 1.435 <0.001
微生物蛋白 MCP/(mg/mL) 4.95a 3.57b 4.99a 0.246 0.001
总挥发性脂肪酸 TVFA/(mmol/L) 68.22 63.03 73.67 3.115 0.085
乙酸 Acetate/% 70.63 70.62 69.68 0.372 0.150
丙酸 Propionate/% 21.80 22.37 22.37 0.392 0.510
异丁酸 Isobutyrate/% 1.33a 1.17b 1.29a 0.038 0.028
丁酸 Butyrate/% 4.56ab 4.34b 4.88a 0.115 0.016
异戊酸 Isovalerate/% 1.17 1.07 1.29 0.065 0.087
戊酸 Valerate/% 0.51 0.43 0.50 0.035 0.192
乙丙比 Acetate/propionate 3.24 3.16 3.13 0.069 0.490

2.4 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃微生物区系的影响

2.4.1 Alpha多样性分析

通过测序,从18个瘤胃液样本中共获得857 097条优质细菌16S rRNA基因序列,每个样本平均产生40 238条,序列平均长度为416 bp。由表5可知,各组Good’s Coverage指数均超过了0.99,表明测序数据量充足且准确性高,能够准确地反映肉牛瘤胃中微生物的组成;各组间ASVs数量、ACE指数、Chao指数、Shannon指数、Simpson指数均无显著差异(P>0.05)。
表5 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃微生物Alpha多样性的影响

Table 5 Effects of supplementing slow-release urea in a low-protein diet on Alpha diversity of rumen microbiota of beef cattle

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON LP SRU
ASVs数量 ASVs number 1 836.67 1 756.50 1 819.17 96.921 0.830
ACE指数 ACE index 1 875.41 1 785.59 1 847.76 106.613 0.832
Chao指数 Chao index 1 855.64 1 771.88 1 830.47 101.489 0.838
Shannon指数 Shannon index 6.75 6.73 6.77 0.062 0.915
Simpson指数 Simpson index 0.002 0.003 0.002 0.000 1 0.756
Good’s Coverage指数 Good’s Coverage index 0.998 0.998 0.998 0.001 2 0.763

2.4.2 Venn图分析

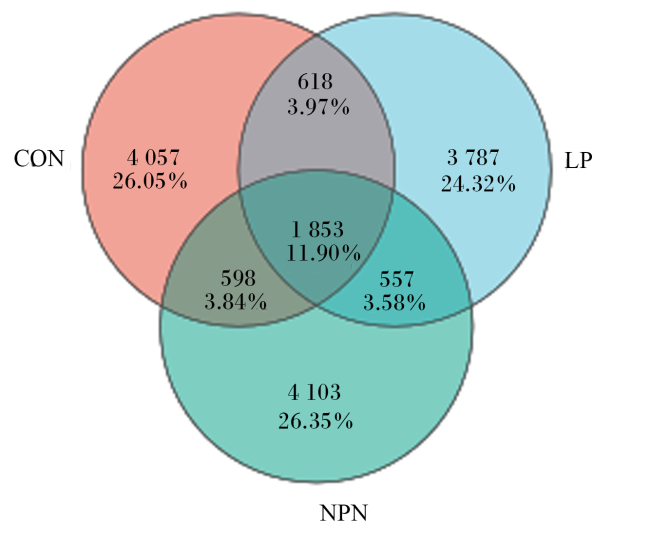
图1所示,3个组共聚类得到15 573个ASVs,CON组、LP组、SRU组ASVs数量分别为7 126、6 815、7 111个,3组共有的ASVs数量为1 853个,占总数的11.90%,特有的ASVs数量分别为4 057(26.05%)、3 787(24.32%)、4 103个(26.35%),表明各组ASVs组成差异较小。
图1 基于ASVs水平的Venn图

Con、LP、NPN分别代表CON组、LP组、SRU组。图2同。

Fig.1 Venn graph based on ASVs level

Con, LP and NPN mean groups CON, LP and SRU, respectively. The same as Fig.2.

2.4.3 PCoA图分析

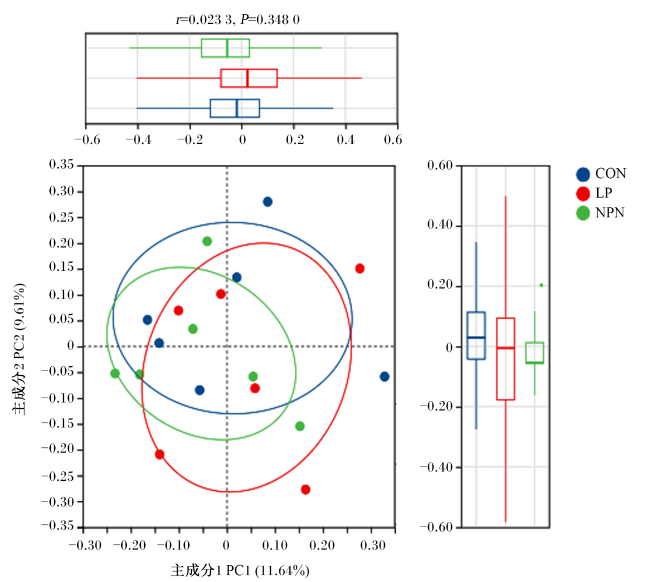
在ASVs水平上基于Bray-Curtis距离得到肉牛瘤胃微生物的PCoA图,如图2所示,主成分1(PC1)和主成分2(PC2)这2个主成分的贡献值分别为11.64%、9.61%;各组样本点聚类后重合度较高(P=0.348 0),表明在低蛋白质饲粮中添加缓释尿素对瘤胃微生物结构的影响较小。
图2 肉牛瘤胃微生物PCoA图

Fig.2 PCoA graph of rumen microbiota of beef cattle

2.4.4 瘤胃微生物组成分析

18个样本测序后经过序列比对和注释共得到23个门、41个纲、86个目、144个科、303个属、751个种。由表6可知,各组瘤胃微生物中芽孢杆菌门(Bacillota)[曾用名:厚壁菌门(Firmicutes)]和拟杆菌门(Bacteroidota)的相对丰度均超过40%,为瘤胃内的优势菌门;LP组髌骨菌门的相对丰度显著高于CON组和SRU组(P<0.05)。
表6 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃微生物组成的影响(门水平相对丰度)

Table 6 Effects of supplementing slow-release urea in a low-protein diet on rumen microbial composition of beef cattle (relative abundance at phylum level)

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON LP SRU
芽孢杆菌门 Bacillota 48.94 48.45 47.08 2.598 0.871
拟杆菌门 Bacteroidota 44.28 43.67 46.38 2.446 0.718
髌骨菌门 Patescibacteria 1.48b 2.58a 1.98b 0.244 0.020
螺旋菌门 Spirochaetota 1.71 1.43 1.57 0.285 0.779
纤维杆菌门 Fibrobacterota 0.91 0.68 0.63 0.162 0.446
疣微菌门 Verrucomicrobiota 0.61 0.78 0.65 0.099 0.465
假单胞菌门 Pseudomonadota 0.45 1.03 0.35 0.370 0.393
放线菌门 Actinomycetota 0.60 0.59 0.44 0.134 0.643
热脱硫杆菌门 Thermodesulfobacteriota 0.42 0.34 0.41 0.054 0.541
unclassified_k__norank_d__Bacteria 0.42 0.23 0.32 0.084 0.333
其他 Others 0.18 0.22 0.19 0.048 0.814
表7所示,各组瘤胃微生物中木聚糖杆菌属(Xylanibacter)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)和norank_f__F082的相对丰度均高于5%,为优势菌属;LP组NK4A214群(NK4A214_group)的相对丰度显著低于CON组(P<0.05),与SRU组无显著差异(P>0.05);CON组毛螺菌科NK3A20群(Lachnospiraceae_NK3A20_group)的相对丰度显著高于LP组和SRU组(P<0.05)。
表7 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃微生物组成的影响(属水平相对丰度)

Table 7 Effects of supplementing slow-release urea in a low-protein diet on rumen microbial composition of beef cattle (relative abundance at genus level)

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON LP SRU
木聚糖杆菌属 Xylanibacter 11.67 13.29 14.99 2.165 0.568
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
11.05 10.75 9.52 0.747 0.337
norank_f__F082 7.07 6.29 6.23 0.665 0.616
瘤胃球菌属 Ruminococcus 3.32 4.07 2.93 0.593 0.405
NK4A214群 NK4A214_group 3.92a 2.77b 3.03ab 0.300 0.039
克里斯滕森菌科R7群
Christensenellaceae_R-7_group
3.58 2.72 3.13 0.376 0.300
拟杆菌目RF16群 Bacteroidales_RF16_group 3.00 3.07 2.46 0.336 0.393
普雷沃氏菌科UCG-003
Prevotellaceae_UCG-003
2.18 1.94 3.13 0.544 0.294
norank_o__RF39 2.01 2.67 2.36 0.250 0.206
未分类的梭菌纲 unclassified_c__Clostridia 2.38 2.48 2.15 0.262 0.668
梭菌纲UCG-014 Clostridia_UCG-014 1.65 2.29 2.72 0.436 0.251
Saccharofermentans 2.15 2.10 1.90 0.258 0.775
产粪甾醇真杆菌群
[Eubacterium]_coprostanoligenes_group
1.73 2.29 1.99 0.207 0.199
毛螺菌科NK3A20群
Lachnospiraceae_NK3A20_group
2.56a 1.37b 1.74b 0.212 0.004
norank_f__UCG-010 2.17 1.69 1.63 0.185 0.109
其他 Others 39.57 40.20 40.10 1.111 0.912

2.4.5 瘤胃菌属相对丰度与发酵参数的相关性分析

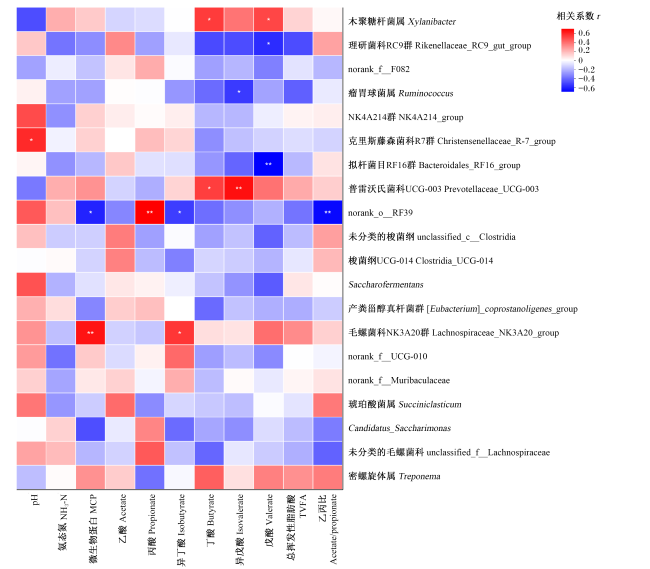
肉牛瘤胃中排名前20的菌属的相对丰度与发酵参数的相关关系如图3所示。pH与克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)的相对丰度呈显著正相关(r=0.554,P=0.017);MCP含量与norank_o__RF39的相对丰度呈显著负相关(r=-0.556,P=0.017),与毛螺菌科NK3A20群的相对丰度呈极显著正相关(r=0.611,P=0.007);丙酸比例与norank_o__RF39的相对丰度呈极显著正相关(r=0.659,P=0.003);异丁酸比例与毛螺菌科NK3A20群的相对丰度呈显著正相关(r=0.520,P=0.027),与norank_o__RF39的相对丰度呈显著负相关(r=-0.488,P=0.040);丁酸比例与普雷沃氏菌科UCG-003(Prevotellaceae_UCG-003)(r=0.502,P=0.034)和木聚糖杆菌属的相对丰度(r=0.509,P=0.031)均呈显著正相关;异戊酸比例与普雷沃氏菌科UCG-003的相对丰度呈极显著正相关(r=0.621,P=0.006),与瘤胃球菌属(Ruminococcus)的相对丰度呈显著负相关(r=-0.494,P=0.037);戊酸比例与拟杆菌目RF16群(Bacteroidales_RF16_group)的相对丰度呈极显著负相关(r=-0.643,P=0.004),与理研菌科RC9肠道群的相对丰度呈显著负相关(r=-0.529,P=0.024),与木聚糖杆菌属的相对丰度呈显著正相关(r=0.480,P=0.044);乙丙比与norank_o__RF39的相对丰度呈极显著负相关(r=-0.622,P=0.006)。
图3 瘤胃菌属相对丰度与发酵参数的相关关系

“*”表示显著相关(P<0.05),“**”表示极显著相关(P<0.01)。

Fig.3 Correlation between relative abundances of rumen bacterial genera and fermentation parameters

“*” indicated a significant correlation (P<0.05), and “**” indicated an extremely significant correlation (P<0.01).

3 讨论

3.1 低蛋白质饲粮中添加缓释尿素对肉牛生长性能的影响

缓释尿素作为一种高效的非蛋白氮饲料添加剂,已在反刍动物生产中广泛应用,并显示出良好的应用效果。然而,关于其对肉牛生长性能的影响,Wei等[17]研究发现,在育肥期饲粮中添加0.9%的缓释尿素对肉牛的DMI和ADG均无显著影响。类似地,Taylor Edwards等[18]在饲粮中添加0.8%的缓释尿素后,也未观察到肉牛DMI、ADG及F/G的显著变化。赵二龙等[19]以缓释尿素替代饲粮中的部分豆粕后亦得到一致结论。本试验结果表明,各组之间ADG和DMI均未出现显著差异,但降低饲粮蛋白质水平后肉牛ADG有所下降,而补充缓释尿素后,其生长性能恢复至与CON组基本一致的水平。这说明降低饲粮蛋白质水平可能对肉牛的生长产生了一定的抑制,但通过补充缓释尿素可在一定程度上缓解该影响。该结果与曹广洲[20]关于降低饲粮蛋白质水平对肉牛生长性能无显著影响的报道,以及Fan等[9]得出的采用缓释尿素替代豆粕对安格斯母牛生长性能未产生负面影响的结论相符。综上可知,在满足肉牛营养需要的前提下,适当降低饲粮蛋白质水平并配合补充缓释尿素,可在维持生长性能的同时有效降低饲料成本。

3.2 低蛋白质饲粮中添加缓释尿素对肉牛血清生化指标的影响

血清生化指标是综合反映动物机体对营养物质吸收利用和健康状况的重要依据。其中,ALT、AST和GGT是参与蛋白质代谢的关键转氨酶,其活性常用于评估肝脏功能状态。ALP广泛分布于肝脏、骨骼及肠道等组织中,可反映机体蛋白质与脂肪的代谢效率,亦可用于辅助判断肝脏功能及骨骼代谢状况。赵二龙等[19]研究显示,以缓释尿素替代部分豆粕对肉牛血清中ALT、AST和ALP活性均无显著影响。本试验中,降低饲粮蛋白质水平并补充缓释尿素后,肉牛血清中ALT、AST和ALP活性亦未发生显著变化,该结果与李红光[21]在肉牛饲粮中添加包被尿素的研究结果一致。TP和ALB含量是反映机体蛋白质合成代谢水平的重要指标。本试验结果表明,降低饲粮蛋白质水平并补充缓释尿素对肉牛血清中TP和ALB含量无显著影响,与赵二龙等[19]的研究结果相符。血清UN作为氮代谢的终产物,其含量可反映饲粮氮的代谢、沉积及机体对蛋白质的利用效率[9]。研究表明,肉牛血清中UN含量与饲粮蛋白质水平呈正相关,降低饲粮蛋白质水平可显著降低母牛血清中UN含量[22]。本试验中,LP组肉牛血清中UN含量显著低于CON组和SRU组,与曹广洲[20]报道的9.53%蛋白质组肉牛血清中UN含量显著低于12.53%蛋白质组的结果一致。这说明适度降低饲粮蛋白质水平有助于减轻机体的氮代谢负担,提高蛋白质利用效率。此外,本试验发现,SRU组肉牛血清中UN含量与CON组相比无显著差异。Salami等[23]也曾报道,在生长期肉牛饲粮中添加3%的缓释尿素对血清中UN和GLU含量均无显著影响。血清GLU含量是反映机体能量供应状况的指标之一,通常与瘤胃丙酸产量呈正相关[17]。本试验结果显示,降低饲粮蛋白质水平及补充缓释尿素对肉牛血清中GLU含量和瘤胃液中丙酸比例均未产生显著影响。

3.3 低蛋白质饲粮中添加缓释尿素对肉牛瘤胃发酵参数的影响

瘤胃内环境稳态是反刍动物维持健康与生产性能的生理基础,其中瘤胃pH作为核心调控指标,不仅能灵敏反映内环境稳态,更是维持瘤胃正常功能的关键[9]。本试验中,3个组的瘤胃pH均处于正常生理范围(6.61~6.75),且组间无显著差异,与Fan等[9]和曹广洲[20]的研究结果一致,表明在饲粮中添加缓释尿素不会对瘤胃内环境产生负面影响。NH3-N和MCP含量是反映瘤胃氮代谢平衡的关键生物标志物,其动态变化直接指示微生物对饲粮蛋白质的转化效率。NH3-N作为蛋白质降解的产物,不仅为MCP合成提供主要氮源,还可调控纤维分解菌和淀粉分解菌的活性。反刍动物通过合理利用缓释尿素,调控瘤胃内氮的释放速率,促进能氮释放同步,进而提高MCP合成效率[24]。Broderick等[25]研究表明,在高碳水化合物饲粮中添加缓释尿素有助于提升泌乳奶牛瘤胃的MCP合成能力。本试验中,LP组肉牛瘤胃中NH3-N含量略低于CON组,且显著低于SRU组,这与云强[26]所报道的荷斯坦公牛瘤胃中NH3-N含量与饲粮蛋白质水平呈正相关的结论一致;同时,MCP含量也呈现相似的变化趋势,与曹力文[24]的研究结果相符。此外,当瘤胃中可降解蛋白质过量或能氮释放不同步时,过量的NH3-N会经吸收转化为血清UN。本试验中,各组肉牛瘤胃中NH3-N含量与血清中UN含量的变化趋势一致,这与Wei等[17]以缓释尿素替代肉牛饲粮中豆粕的研究得出的结果一致,同时也与Orzuna-Orzuna等[27]得出的瘤胃中NH3-N含量与血清中UN含量呈显著正相关的结论相吻合。
反刍动物瘤胃微生物通过发酵饲粮碳水化合物产生VFA,可为宿主提供70%~80%的可消化能。乙酸、丙酸和丁酸是瘤胃VFA的主要组成成分,占TVFA的95%以上。关于缓释尿素对肉牛瘤胃中VFA的影响,现有研究结论不尽一致:有报道表明肉牛饲粮中添加缓释尿素对瘤胃中TVFA、乙酸和丙酸含量无显著影响[17,28],也有研究指出其可显著提高瘤胃中TVFA产量[9,22]。本试验中,各组肉牛瘤胃中TVFA含量以及乙酸、丙酸、戊酸、异戊酸比例与乙丙比均无显著差异,该结果与Cherdthong等[29]在泌乳奶牛饲粮中添加尿素-氯化钙混合物或尿素-硫酸钙混合物未显著改变瘤胃中TVFA含量及VFA比例的研究结果一致,曹力文[24]在湖羊的研究中也得出相似结论,说明缓释尿素的添加并未改变瘤胃VFA的基本发酵模式。丁酸作为微生物发酵的重要产物,是乳脂和体脂合成的前体物。Fan等[9]在安格斯母牛上的研究表明,无论是聚合物包膜尿素还是糊化淀粉包被尿素,均可提高瘤胃中丁酸含量。本试验中,SRU组肉牛瘤胃中丁酸比例显著高于CON组和LP组,与前人研究结果相似,表明在肉牛饲粮中添加缓释尿素有利于促进瘤胃中丁酸及异丁酸的合成。

3.4 低蛋白质饲粮中添加缓释尿素对瘤胃微生物区系的影响

反刍动物瘤胃是一个高度复杂且动态平衡的微生物生态系统,其中细菌、真菌和原生动物等微生物通过相互制约与协作,共同维持瘤胃发酵功能。本试验通过Illumina NextSeq 2000平台测序,从18个样本中共获得857 097条优质序列,平均每个样本40 238条,序列平均长度416 bp,各组Good’s Coverage指数均大于0.99,表明本试验的测序量和测序深度合理,可以反映瘤胃微生物的组成情况。此外,各组样本的多样性指数和丰富度指数均无显著差异,Fan等[9]和曹力文[24]分别在安格斯母牛和湖羊试验中得到类似的结果,表明饲粮中添加缓释尿素不会影响瘤胃微生物的多样性和丰富度。同时,PCoA结果显示,低蛋白质饲粮中添加缓释尿素对瘤胃菌群结构的影响较小。Guo等[30]通过持续动态人工瘤胃模拟系统评价了不同水平缓释尿素对瘤胃微生物的影响,发现缓释尿素不会影响瘤胃微生物的Alpha和Beta多样性。上述结果说明,降低饲粮蛋白质水平和添加缓释尿素不会改变瘤胃微生物的组成和结构。
拟杆菌门主要降解非纤维性碳水化合物,发酵产物以丙酸和琥珀酸为主,而芽孢杆菌门主要降解纤维类物质产生乙酸和丁酸[31]。本试验中,肉牛瘤胃中优势菌门为芽孢杆菌门和拟杆菌门,与以往关于肉牛[32]、绵羊[24]和山羊[33]等反刍动物的报道基本一致。髌骨菌门作为瘤胃中的“精简型共生菌”,主要通过依附生存和代谢物回收参与微生态平衡,通过回收肽或氨基酸片段优化氮利用效率,间接影响瘤胃中氨的含量[34]。本试验中,LP组瘤胃微生物中髌骨菌门的相对丰度显著高于CON组和SRU组,同时瘤胃中NH3-N含量也呈相同的趋势,推测髌骨菌门可能与瘤胃中NH3-N代谢相关。最新分类研究将原普雷沃氏菌属中的部分菌株(尤其是反刍动物来源)划归至木聚糖杆菌属和塞加菌属(Segatella)等新属,其中,瘤胃中的优势菌株(雷沃氏菌)被归入木聚糖杆菌属,而人肠道中的Prevotella copri则被划入塞加菌属[35]。本试验中,肉牛瘤胃的优势菌属为木聚糖杆菌属、理研菌科RC9肠道群和norank_f__F082,与前人研究结果[32-33]不完全一致,推测可能与动物品种与年龄、饲粮结构、饲养管理等不同有关。本试验中,肉牛瘤胃中木聚糖杆菌属的相对丰度与丁酸和戊酸比例呈显著正相关,SRU组丁酸比例显著高于LP组,表明木聚糖杆菌属与丁酸和戊酸的代谢密切相关。NK4A214群属于瘤胃球菌科,可产生内切木聚糖酶和纤维素酶,在纤维素和半纤维素的降解中发挥重要作用[36]。本试验中,LP组NK4A214群的相对丰度显著低于CON组,CON组和SRU组无显著差异,说明NK4A214群可能与蛋白质降解和氨基酸合成与转化相关[37]。毛螺菌科NK3A20群可以将复杂碳水化合物(淀粉、纤维类物质和植物细胞壁等)降解为VFA,为宿主提供能量来源[38]。本试验中,CON组肉牛瘤胃中毛螺菌科NK3A20群的相对丰度显著高于LP组和SRU组,且毛螺菌科NK3A20群的相对丰度与MCP含量和异丁酸比例呈显著或极显著正相关,且CON组和SRU组的MCP含量和异丁酸比例显著高于LP组,表明毛螺菌科NK3A20群与瘤胃中VFA的代谢和MCP的合成密切相关。

4 结论

在本试验条件下,降低肉牛饲粮蛋白质水平会改变瘤胃中髌骨菌门、NK4A214群和毛螺菌科NK3A20群的相对丰度,并影响血清UN含量以及瘤胃NH3-N、MCP含量与丁酸、异丁酸比例;而在低蛋白质饲粮中补充缓释尿素可有效缓解上述变化,且对肉牛的健康和生长性能未产生负面影响。因此,在肉牛低蛋白质饲粮中应用缓释尿素,可在维持生长性能的同时减少豆粕用量,有助于降低饲料成本。
[1]
EDOUARD N, HASSOUNA M, ROBIN P, et al. Low degradable protein supply to increase nitrogen efficiency in lactating dairy cows and reduce environmental impacts at barn level[J]. Animal, 2016, 10(2):212-220.

DOI PMID

[2]
MYER P R, CLEMMONS B A, SCHNEIDER L G, et al. Microbiomes in ruminant protein production and food security[J/OL]. CABI Reviews, 2019[2025-08-01].https://doi.org/10.1079/PAVSNNR201914008.

[3]
BRODERICK G A. Review:optimizing ruminant conversion of feed protein to human food protein[J]. Animal, 2018, 12(8):1722-1734.

DOI

[4]
HESS M, PAUL S S, PUNIYA A K, et al. Anaerobic fungi:past,present,and future[J]. Frontiers in Microbiology, 2020, 11:584893.

DOI

[5]
WANG R, WANG M, UNGERFELD E M, et al. Nitrate improves ammonia incorporation into rumen microbial protein in lactating dairy cows fed a low-protein diet[J]. Journal of Dairy Science, 2018, 101(11):9789-9799.

DOI PMID

[6]
XIN H S, SCHAEFER D M, LIU Q P, et al. Effects of polyurethane coated urea supplement on in vitro ruminal fermentation,ammonia release dynamics and lactating performance of Holstein dairy cows fed a steam-flaked corn-based diet[J]. Asian-Australasian Journal of Animal Sciences, 2010, 23(4):491-500.

DOI

[7]
SADEGHI M, GHASEMI E, SADEGHI R, et al. Dietary macronutrient composition and partial soybean meal replacement with slow-release urea:effects on performance,digestibility,rumen fermentation,and nitrogen metabolism in dairy cows[J]. Journal of Dairy Science, 2025, 108(1):511-526.

DOI

[8]
冯仰廉. 反刍动物营养学[M]. 北京: 科学出版社, 2004.

FENG Y L. Ruminant nutrition[M]. Beijing: Science Press, 2004. (in Chinese)

[9]
FAN C Y, LI H G, LI S H, et al. Effect of different slow-release urea on the production performance,rumen fermentation,and blood parameter of angus heifer[J]. Animals, 2024, 14(16):2296.

DOI

[10]
CHERDTHONG A, WANAPAT M, RAKWONGRIT D, et al. Supplementation effect with slow-release urea in feed blocks for Thai beef cattle-nitrogen utilization,blood biochemistry,and hematology[J]. Tropical Animal Health and Production, 2014, 46(2):293-298.

DOI

[11]
朱志宏. 缓释尿素的制备及替代日粮中部分豆粕对奶牛生产性能、血液代谢指标和瘤胃发酵参数的影响[D].硕士学位论文. 银川: 宁夏大学, 2025.

ZHU Z HPreparation of slow-release urea and the impact of partial soybean meal replacement in feeds on the performance, blood metabolism indicators, and rumen fermentation parameters of dairy cows[D].Master’s Thesis. Yinchaun: Ningxia University, 2025. (in Chinese)

[12]
中华人民共和国农业部. 肉牛饲养标准:NY/T815—2004[S]. 北京: 中国农业出版社, 2004.

Ministry of Agriculture of the People’s Republic of China. Feedingstandardofbeefcattle:NY/T815—2004[S]. Beijing: China Agriculture Press, 2004. (in Chinese)

[13]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[14]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of the method of measuring ammonia N concentration of rumen liquid by colorimetric determination[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[15]
BRADFORD M M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding[J]. Analytical Biochemistry, 1976, 72(1/2):248-254.

DOI

[16]
CAO Y C, YANG H J. Ruminal digestibility and fermentation characteristics in vitro of fenugreek and alfalfa hay combination with or without the inoculation of Neocallimastix sp.YAK11[J]. Animal Feed Science and Technology, 2011, 169(1/2):53-60.

DOI

[17]
WEI C, TAO H Y, LIU G F, et al. Isobutyramide and slow-release urea as substitutes for soybean meal in the finishing diet of beef cattle[J]. Animals, 2024, 14(9):1321.

DOI

[18]
TAYLOR-EDWARDS C C, ELAM N A, KITTS S E, et al. Influence of slow-release urea on nitrogen balance and portal-drained visceral nutrient flux in beef steers[J]. Journal of Animal Science, 2009, 87(1):209-221.

DOI

[19]
赵二龙, 冯春燕, 王剑飞, 等. 一种新型缓释尿素替代日粮中部分豆粕对肉牛生长性能、养分消化率及血液生化指标的影响[J]. 中国畜牧兽医, 2019, 46(4):994-1001.

DOI

ZHAO E L, FENG C Y, WANG J F, et al. Effect of a slow-release urea substituting dietary soybean meal on growth performance,nutrient digestibility and blood biochemical indexes of beef cattle[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(4):994-1001. (in Chinese)

[20]
曹广洲. 日粮蛋白质水平对育肥后期西门塔尔杂交牛生产性能、相关代谢、瘤胃菌群的影响以及蛋白质需要研究[D].硕士学位论文. 南昌: 江西农业大学, 2024.

CAO G Z. Effects of dietary protein level on performance,metabolism,rumen microflora and protein requirement of Simmental hybrid cattle in late fattening period[D].Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2024. (in Chinese)

[21]
李红光. 不同缓释尿素对安格斯后备母牛饲喂效果及其机理研究[D].硕士学位论文. 合肥: 安徽农业大学, 2021.

LI H G. Effect and mechanism of feeding different slow release urea on Angus heifers[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2021. (in Chinese)

[22]
KIRWAN S F, PIERCE K M, SERRA E, et al. Effect of chitosan inclusion and dietary crude protein level on nutrient intake and digestibility,ruminal fermentation,and N excretion in beef heifers offered a grass silage based diet[J]. Animals, 2021, 11(3):771.

DOI

[23]
SALAMI S A, DEVANT M, APAJALAHTI J, et al. Slow-release urea as a sustainable alternative to soybean meal in ruminant nutrition[J]. Sustainability, 2021, 13(5):2464.

DOI

[24]
曹力文. 缓释尿素瘤胃缓释效果的评价及其对育肥湖羊瘤胃发酵和菌群结构的影响[D].硕士学位论文. 南京: 南京农业大学, 2023.

CAO L W. Evaluation of the slow-release effect of slow-release urea and its effect on rumen fermentation and ruminal bacterial community in fattening Hu sheep[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2023. (in Chinese)

[25]
BRODERICK G A, STEVENSON M J, PATTON R A. Effect of dietary protein concentration and degradability on response to rumen-protected methionine in lactating dairy cows[J]. Journal of Dairy Science, 2009, 92(6):2719-2728.

DOI PMID

[26]
云强. 蛋白水平及Lys/Met对断奶犊牛生长、消化代谢及瘤胃发育的影响[D].硕士学位论文. 北京: 中国农业科学院, 2010.

YUN Q. Effects of protein level and Lys/Met on performance,nutrient digestibility and rumen development for weaned calves[D].Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2010. (in Chinese)

[27]
ORZUNA-ORZUNA J F, DORANTES-ITURBIDE G, LARA-BUENO A, et al. A Meta-analysis of essential oils use for beef cattle feed: rumen fermentation,blood metabolites,meat quality,performance,and environmental and economic impact[J]. Fermentation, 2022, 8(6):254.

DOI

[28]
GARDINAL R, GANDRA J R, CALOMENI G D, et al. Effects of polymer coated slow-release urea on ruminal fermentation and nutrient total tract digestion of beef steers[J]. Revista Brasileira de Zootecnia, 2016, 45(2):63-70.

DOI

[29]
CHERDTHONG A, WANAPAT M, WACHIRAPAKORN C. Effects of urea-calcium mixture in concentrate containing high cassava chip on feed intake,rumen fermentation and performance of lactating dairy cows fed on rice straw[J]. Livestock Science, 2011, 136(2/3):76-84.

DOI

[30]
GUO Y M, XIAO L, JIN L, et al. Effect of commercial slow-release urea product on in vitro rumen fermentation and ruminal microbial community using RUSITEC technique[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):56.

DOI

[31]
QI W, XUE M Y, JIA M H, et al. Understanding the functionality of the rumen microbiota:searching for better opportunities for rumen microbial manipulation[J]. Animal Bioscience, 2024, 37(2):370-384.

DOI

[32]
MYER P R, SMITH T P L, WELLS J E, et al. Rumen microbiome from steers differing in feed efficiency[J]. PLoS One, 2015, 10(6):e0129174.

DOI

[33]
BELANCHE A, DE LA FUENTE G, NEWBOLD C J. Effect of progressive inoculation of fauna-free sheep with holotrich protozoa and total-fauna on rumen fermentation,microbial diversity and methane emissions[J]. FEMS Microbiology Ecology, 2015, 91(3):fiu026.

[34]
GHARECHAHI J, VAHIDI M F, BAHRAM M, et al. Metagenomic analysis reveals a dynamic microbiome with diversified adaptive functions to utilize high lignocellulosic forages in the cattle rumen[J]. The ISME Journal, 2021, 15(4):1108-1120.

DOI

[35]
MUROVEC U, ACCETTO T. Transcriptomic analysis of polysaccharide utilization loci reveals substrate preferences in ruminal generalists Segatella bryantii TF1-3 and Xylanibacter ruminicola KHP1[J]. BMC Genomics, 2024, 25(1):495.

DOI

[36]
PANG K Y, CHAI S T, YANG Y K, et al. Dietary forage to concentrate ratios impact on yak ruminal microbiota and metabolites[J]. Frontiers in Microbiology, 2022, 13:964564.

DOI

[37]
MA X Y, LA Y F, YANG G W, et al. Multi-omics revealed the effects of dietary energy levels on the rumen microbiota and metabolites in yaks under house-feeding conditions[J]. Frontiers in Microbiology, 2023, 14:1309535.

DOI

[38]
YI S M, WU H, LIU Y, et al. Concentrate supplementation improves cold-season environmental fitness of grazing yaks:responsive changes in the rumen microbiota and metabolome[J]. Frontiers in Microbiology, 2023, 14:1247251.

DOI

Outlines

/