RESEARCH PAPER

Investigating Mechanism of Rutin in Alleviating Porcine Intestinal Damage Based on Network Pharmacology and Molecular Docking Technology

  • HUO Lele , 1, 2 ,
  • WANG Binbin 1, 2 ,
  • TIAN Wanru 1, 2 ,
  • LI Mengxuan 1, 2 ,
  • LIU Jiying , 1, 2, *
Expand
  • 1 Jiangsu Provincial Key Laboratory of Sericulture and Livestock Biotechnology, School of Biotechnology, Jiangsu University of Science and Technology, Zhenjiang 212100, China
  • 2 Key Laboratory of Sericulture Genetic Improvement, Ministry of Agriculture and Rural Affairs, Sericulture Science Research Center, Chinese Academy of Agricultural Sciences, Zhenjiang 212100, China
*associate professor, E-mail:

Received date: 2025-08-28

  Online published: 2026-03-16

Abstract

This study aimed to predict the mechanism by which rutin alleviates porcine intestinal damage using network pharmacology, molecular docking technology, and in vitro cell experiments, so as to provide insights for the application of rutin in livestock and poultry production. Targets of rutin were retrieved from the Traditional Chinese Medicine Systems Pharmacology (TCMSP), SwissTargetPrediction, TargetNet, SuperPred, and PharmMapper databases. Targets related to intestinal damage were collected from the GeneCards database. Overlapping targets were identified, and a protein-protein interaction (PPI) network for porcine intestinal damage was constructed using the STRING database. Core targets were screened with Cytoscape 3.8.0. Gene Ontology (GO) functional and Kyoto Encyclopedia of Genes and Genomes (KEGG) pathway enrichment analyses were performed on the overlapping targets using the DAVID database. A rutin-intestinal damage target-signaling pathway network was built with Cytoscape 3.8.0. Molecular docking between rutin and the core targets was conducted using AutoDock Vina 1.2.5 and visualized with PyMOL 2.6. Finally, quantitative real-time PCR (RT-qPCR) was performed on intestinal porcine epithelial cell line J2 (IPEC-J2) for experimental validation. The results showed as follows: 1) a total of 357 action targets of rutin and 14 729 intestinal damage-related targets (after quality control) were obtained, with 182 overlapping targets. The PPI network consisted of 174 nodes and 140 edges, with an average node degree of 4.37. 2) The core targets identified were insulin (INS), heat shock protein 90 alpha family class A member 1 (HSP90AA1), hypoxia-inducible factor 1 alpha (HIF1A), Toll-like receptor 4 (TLR4), and estrogen receptor 1 (ESR1). Molecular docking confirmed stable binding between rutin and these core targets. 3) GO analysis yielded 170 biological processes (BP), 44 cellular components (CC), and 89 molecular functions (MF). KEGG enrichment analysis identified 97 signaling pathways. 4) In vitro experiments showed that, compared with the control group, rutin significantly increased the mRNA relative expression levels of HSP90AA1 and ESR1 (P<0.05) and significantly decreased the mRNA relative expression level of HIF1A (P<0.05), while no significant effects were observed on INS and TLR4 mRNA relative expression levels (P>0.05). In conclusion, rutin may alleviate porcine intestinal damage by interacting with core targets such as HSP90AA1, HIF1A, and ESR1, and cooperatively regulating key pathways including the C-type lectin receptor signaling pathway, HIF-1 signaling pathway, adipocytokine signaling pathway, and glucagon signaling pathway, thereby suppressing inflammation, enhancing cellular stress tolerance, and promoting tissue repair.

Cite this article

HUO Lele , WANG Binbin , TIAN Wanru , LI Mengxuan , LIU Jiying . Investigating Mechanism of Rutin in Alleviating Porcine Intestinal Damage Based on Network Pharmacology and Molecular Docking Technology[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 2219 -2232 . DOI: 10.12418/CJAN2026.178

我国是世界最大的猪肉生产国与消费国,生猪产业在国民经济中占据举足轻重的地位[1]。由于国内市场需求持续旺盛,生猪产业依然存在巨大的增产潜力。肠道不仅是猪消化吸收营养物质的核心器官[2],也是抵御病原体和毒素入侵机体的关键物理屏障[3]。多种应激因素,例如仔猪断奶、饲料原料变更、霉菌毒素污染等,都可能破坏肠道屏障的完整性,引发肠道损伤[4-6]。肠道损伤会引起肠绒毛萎缩、隐窝加深等组织学改变,导致营养物质消化吸收效率降低和腹泻率升高,最终严重影响猪的生长性能和饲料转化效率[7-8]。植物源性饲料添加剂因其天然、安全的特性,在提高猪的生长性能、增强营养物质消化能力和维护肠道健康方面显示出巨大应用前景[9-12]。芦丁(rutin)是一种广泛存在于植物中的黄酮类化合物,具有抗氧化、抗炎、抗菌等多种生物活性[13]。研究发现,在“替抗”养殖方面芦丁已经逐步应用于动物生产中[14]。有研究表明,芦丁可提高断奶仔猪抗氧化能力和肠屏障功能,减少炎症发生和细胞凋亡[15];饲粮添加500 mg/kg芦丁会改善肠道形态,增强肠道屏障缓解腹泻,通过激活核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)/Kelch样环氧氯丙烷关联蛋白1(Kelch-like epichlorohydrin-associated protein 1,Keap1)信号通路增强抗氧化能力[16];饲粮添加芦丁具有改善断奶仔鼠肠道形态及屏障,提高抗氧化能力和降低血脂的功能,其适宜添加剂量为500 mg/kg[17]。这些研究表明,芦丁能够减少肠道损伤,促进动物机体健康,但芦丁缓解肠道损伤的具体分子机制尚不清楚。本研究立足于畜牧业生产中的肠道损伤防治需求,聚焦芦丁的作用机制,运用网络药理学进行宏观靶点预测,结合分子对接技术实现关键靶点微观验证,并通过体外细胞试验的实时荧光定量逆转录PCR(RT-qPCR)检验从基因表达层面系统阐明芦丁缓解猪肠道损伤的作用机制,为其开发应用提供理论依据。

1 材料与方法

1.1 数据库及软件

本研究所用到的主要数据库及软件如表1所示。
表1 主要数据库及软件

Table 1 Main databases and softwares

名称 Name 网址 URL
数据库 Databases
中药系统药理学数据库 TCMSP database https://tcmsp-e.com/tcmsp.php
PubChem数据库 PubChem datebase https://pubchem.ncbi.nlm.nih.gov
SwissTargetPrediction数据库 SwissTargetPrediction database http://www.swisstargetprediction.ch
TargetNet数据库 TargetNet database http://targetnet.scbdd.com
SuperPred数据库 SuperPred database http://prediction.charite.de
PharmMapper数据库 PharmMapper database https://www.lilab-ecust.cn/pharmmapper
Uniprot数据库 Uniprot database https://www.uniprot.org
GeneCards数据库 GeneCards database https://www.genecards.org
微生信云平台 Weishengxinyun platform https://www.bioinformatics.com.cn
STRING平台数据库 STRING database https://string-db.org
DAVID数据库 DAVID database https://david.ncifcrf.gov
GenBank数据库 GenBank database https://www.ncbi.nlm.nih.gov
PDB数据库 PDB database https://www.rcsb.org
软件 Softwares
Cytoscape 3.8.0 https://cytoscape.org
AutoDock Vina 1.2.5 https://vina.scripps.edu
Pymol 2.6 https://pymol.org
GraphPad Prism 9.0 https://www.graphpad.com

1.2 芦丁作用靶点预测

以“Rutin”为关键词,在中药系统药理学(TCMSP)数据库进行检索,获得芦丁的成药性评价参数。通过TCMSP数据库获得芦丁的mol2格式和PubChem CID信息,之后通过PubChem CID在PubChem数据库中查找得到简化分子输入线性输入系统(simplified molecular input line entry system,SMILES)表达式,将表达式分别导入SwissTargetPrediction数据库、TargetNet数据库和SuperPred数据库进行靶点预测,对预测结果进行筛选,去除概率值(Probability)=0的靶点。将芦丁的mol2格式文件导入PharmMapper数据库进行作用靶点预测并对结果进行筛选,筛选条件为标准化拟合分数(Normfit)≥0.5。整合以上所有数据库筛选后得到的靶点信息,去除重复项,获得芦丁作用靶点。随后,将所得到的芦丁作用靶点导入Uniprot数据库,将靶点名称转换为基因名称。

1.3 肠道损伤相关靶点预测

在GeneCards数据库中以“Intestinal damage”关键词进行检索,获得肠道损伤相关靶点信息;接着将获得的靶点信息导入Uniprot数据库,将靶点名称转换为基因名称。

1.4 芦丁作用靶点与肠道损伤相关靶点交集分析

将芦丁作用靶点与肠道损伤相关靶点导入微生信作图平台,制作两者交集靶点的韦恩图。获得两者的交集靶点,这些靶点即为芦丁作用肠道损伤的靶点集合。

1.5 蛋白质-蛋白质相互作用(PPI)网络构建

将芦丁作用靶点与肠道损伤相关靶点的交集靶点输入STRING数据库中,设置生物物种为“Sus scrofa”(猪),设定置信度≥0.400隐藏游离节点,构建PPI网络。将获得的互作数据以TSV格式导出。

1.6 芦丁缓解猪肠道损伤的核心靶点筛选

将STRING导出的数据导入Cytoscape 3.8.0软件,运行Cyto NCA程序,以点度中心性(degree centrality)、介度中心性(betweenness centrality)和接近中心性(closeness centrality)大于等于所有节点的中位数为参数标准对PPI网络进行过滤,筛选核心靶点。

1.7 基因本体(GO)功能和京都基因与基因组百科全书数据库(KEGG)通路富集分析

将芦丁作用靶点与肠道损伤相关靶点的交集靶点导入DAVID数据库,选择“官方-基因-符合(OFFICIAL-GENNE-SYMBOL)”,物种选择“Sus scrofa”,数据库分析后,下载GO功能与KEGG通路富集分析结果。根据P值进行升序排序,筛选出GO功能富集分析排名前10的结果和KEGG通路富集分析排名前30的结果,使用微生信在线作图平台对富集结果进行可视化处理。

1.8 芦丁-肠道损伤靶点-信号通路网络构建

首先将芦丁与1.3中筛选的肠道损伤相关靶点进行匹配,其次提取KEGG通路富集分析中排名前20的通路的富集基因信息,最后明确核心通路与猪肠道损伤过程的靶向对应关系。将整理后的数据导入Cytoscape 3.8.0软件,运行Cyto NCA程序,调整关键参数后对网络构建结果进行可视化处理。

1.9 分子对接验证

在Uniprot数据库中查找靶点的ID号,导入PDB数据库中,下载靶点的3D结构,导入Pymol 2.6软件中,做去水、去配体处理。使用PubChem数据库下载芦丁的2D结构,通过AutoDock Vina 1.2.5软件进一步处理蛋白质,最后通过Pymol 2.6软件进行可视化处理。按照1 kcal/mol=4.184 kJ/mol进行换算得到结果。

1.10 体外细胞试验验证

1.10.1 猪小肠上皮细胞系(IPEC-J2)细胞培养

将细胞冻存管从液氮中取出,放入水浴锅中晃动使其融化,75%酒精消毒后放入超净台中,将其转移至15 mL离心管中,加入1 mL含10%胎牛血清(fetal bovine serum,FBS)和1%青-链霉素的DMEM/F-12培养基(武汉塞维尔生物科技有限公司),72.5×g离心5 min重悬细胞,放置在37 ℃、5% CO2的FormaTM Series Ⅱ培养箱(3111.311,Thermo Fisher科技有限公司)中培养。当细胞长至约80%时用0.25%胰酶(上海碧云天生物技术有限公司)进行消化传代。当细胞长至约80%时进行铺板,将细胞分为试验组与对照组,试验组细胞贴壁后加入200 μmol/L芦丁(纯度≥95%,上海源叶生物科技有限公司),处理24 h后提取细胞总RNA;对照组细胞贴壁后加入完全培养基培养24 h,提取细胞总RNA。

1.10.2 RNA提取

细胞处理完后,用4 ℃预冷的磷酸盐缓冲液(PBS)清洗2遍,每孔加入1 mL RNAiso Plus裂解液(TaKaRa生物公司)后在冰上静置10 min,每管加200 μL氯仿后上下颠倒离心管,4 ℃条件下12 900×g离心10 min,用无酶枪头吸取上清液转移到新的无酶离心管中,再加入等量的异丙醇静置10 min后放入-20 ℃过夜,4 ℃条件下12 900×g离心10 min,弃去上清液,向沉淀中加入1 mL预冷的75%乙醇,然后4 ℃条件下12 900×g离心5 min,弃去上清晾干,加入15 μL的DEPC水溶解,用NanoDrop 2000超微量分光光度计(Thermo Fisher科技有限公司)检测其浓度与纯度,260 nm与280 nm处的吸光度比值(OD260/OD280)应在1.8~2.0。

1.10.3 反转录

按照反转录试剂盒(TaKaRa生物科技公司)对提取的细胞RNA在无RNA酶离心管中进行去除基因组DNA和反转录反应,按照反转录试剂盒说明书进行反转录。

1.10.4 引物设计

根据GenBank数据库查找猪相关基因编码序列(CDS区序列),设计定量引物,引物序列如表2所示。
表2 RT-qPCR引物序列

Table 2 Primer sequences for RT-qPCR

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
登录号
Accession number
甘油醛-3-磷酸脱氢酶
GAPDH
F:TCGGAGTGAACGGATTTGGC
R:TGCCGTGGGTGGAATCATAC
147 NM_001206359.1
胰岛素
INS
F:TTCTTCTACACGCCCAAGGC
R:TTATTGGGTTTTGGGGTGCG
234 NM_001109772.2
热休克蛋白90αA1
HSP90AA1
F:GGAGAAGAAAGTCGAAAAGGTGG
R:AGAGGGAATGCAGACAGCGT
516 NM_213973.2
缺氧诱导因子1α
HIF1A
F:TCAAGCAGTAGGAATTGGAACA
R:AGAACCGTGAATGTGCTGTC
511 NM_001123124.1
Toll样受体4
TLR4
F:TGGATTTATCCAGCCAGGACG
R:CAGTCCTGTGTATCTCGGGC
622 NM_001293317.1
雌激素受体1
ESR1
F:GCAAAGAGGGTGCCAGGATT
R:GTGCGACAGGGATTCTTGGA
755 XM_021083075.1

1.10.5 RT-qPCR

RT-qPCR反应体系按照每个反应总体积为10 μL进行配制,其中包括2×MagicSYBR混合液5 μL、正向引物0.2 μL、反向引物0.2 μL、模板DNA 1 μL,双蒸水补足至10 μL。PCR扩增程序设置如下:首先,95 ℃预变性30 s;随后进行40~45个循环的扩增,每个循环包括95 ℃变性5 s和60 ℃退火/延伸30 s;最后进行熔解曲线分析,按照95 ℃保持15 s、60 ℃保持1 min、95 ℃保持15 s、50 ℃保持30 s的步骤运行。

1.11 数据统计与分析

采用GraphPad Prism 9.0软件绘制图表,运用t检验法对数据进行显著性分析,P<0.05表示差异显著。

2 结果与分析

2.1 芦丁的作用靶点和肠道损伤相关靶点预测

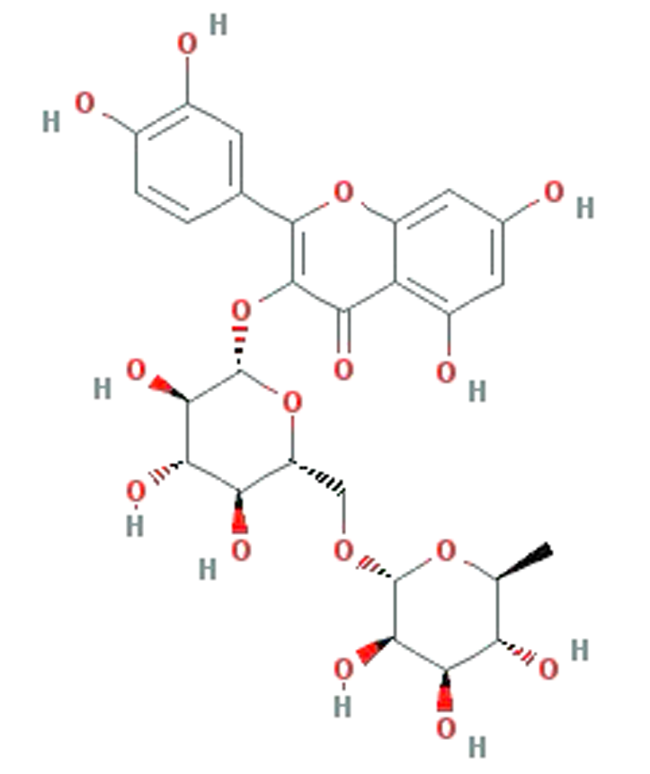
以“Rutin”为关键词,在TCMSP数据库中检索,得到芦丁的成药性评价参数如下:类药性(drug likeness,DL)为0.68,口服生物利用度(oral bioavailability,OB)为3.20%,Caco-2细胞渗透性(Caco2)为-1.93;其化学结构如图1所示。通过在TCMSP数据库、SwissTargetPrediction数据库、TargetNet数据库、SuperPred数据库和PharmMapper数据库这5个不同的数据库中以“Rutin”为关键词进行检索,筛选去重后得到芦丁作用靶点357个。在GeneCards数据库中以“Intestinal damage”为关键词进行检索,获得肠道损伤相关靶点14 729个。
图1 芦丁的化学结构

Fig.1 Chemical structure of rutin

2.2 芦丁作用靶点与肠道损伤相关靶点交集分析

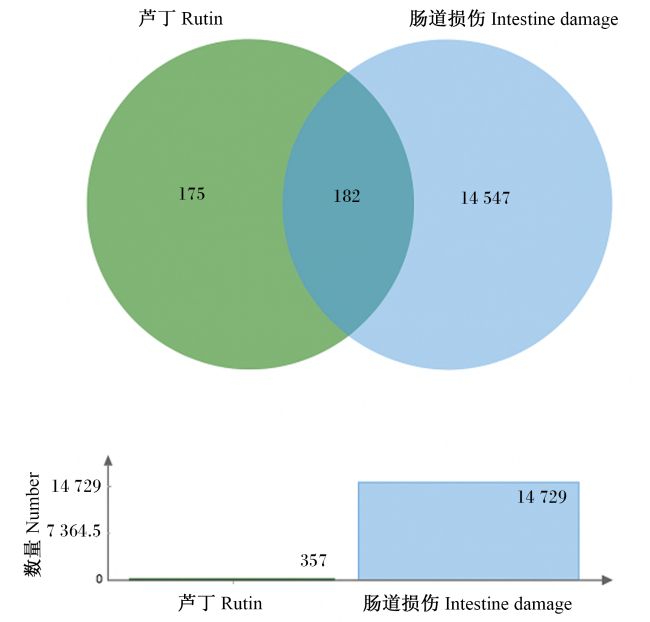
将芦丁作用靶点与肠道损伤相关靶点导入微生信作图平台制作二者交集靶点的韦恩图。结果如图2所示共得到交集靶点182个,这些靶点即为芦丁可能缓解肠道损伤的靶点。
图2 芦丁作用靶点与肠道损伤相关靶点交集Venn图

Fig.2 Venn diagram of intersection between action targets of rutin and intestinal damage-related targets

2.3 PPI网络图构建

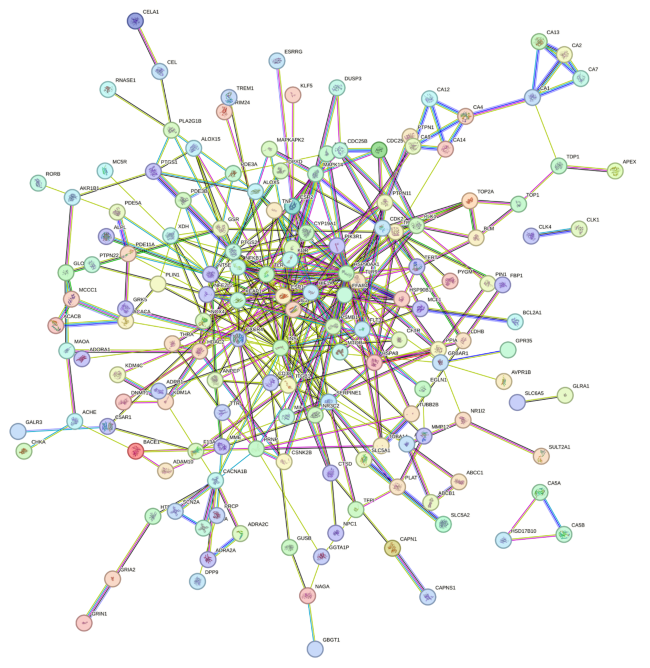
将交集靶点输入STRING数据库中,隐藏游离节点,构建PPI网络图,结果如图3所示。该网络图由174个节点和140条边组成,平均节点度为4.37,其中节点对应174个具有相互作用的蛋白质,边对应140个蛋白质间的相互作用关系。在该网络中,单个蛋白质之间的连线越多,代表其与其他蛋白质的相互关系越复杂。
图3 芦丁缓解猪肠道损伤的PPI网络图

仅注释图中关键节点 annotate only the key nodes in the diagram。HSP90AA1:热休克蛋白90αA1 heat shock protein 90 alpha family class a member 1;HIF1A:缺氧诱导因子1α hypoxia inducible factor 1 subunit alpha;INS:胰岛素 insulin;TLR4:Toll样受体4 Toll like receptor 4;ESR1:雌激素受体1 estrogen receptor 1;CXCR4:CXC趋化因子受体4 c-x-c motif chemokine receptor 4;PTGS2:前列腺素内过氧化物合酶2 prostaglandin-endoperoxide synthase 2;NFKB1:核因子κB亚基1 nuclear factor kappa B subunit 1;MAPK1:丝裂原活化蛋白激酶1 mitogen-activated protein kinase 1;IL2:白细胞介素2 interleukin 2;KDR:血管内皮生长因子受体2 kinase insert domain receptor 2;PIK3R1:磷脂酰肌醇3激酶调节亚基1 phosphoinositide-3-kinase regulatory subunit 1;CD38:分化抗原38 cluster of differentiation 38;HDAC2:组蛋白去乙酰化酶2 histone deacetylase 2;SERPINE1:丝氨酸蛋白酶抑制剂E1 serine protease inhibitor E1;MME:中性内肽酶 membrane metalloendopeptidase;PLK1:极性样激酶1 polo like kinase 1;XDH:黄嘌呤脱氢酶 xanthine dehydrogenase;GSR:谷胱甘肽还原酶 glutathione-disulfide reductase;MTOR:雷帕霉素靶蛋白 mechanistic target of rapamycin;Nrf2:核因子E2相关因子2 nuclear factor E2-related factor 2;ANPEP:氨肽酶N alanyl aminopeptidase, membrane;NOX4:NADPH氧化酶4 NADPH oxidase 4;CD28:分化抗原28 cluster of differentiation 28;ABCG2:ATP结合盒转运蛋白G2 ATP binding cassette subfamily g member 2;TERT:端粒酶逆转录酶 telomerase reverse transcriptase;FLT3:Fms样酪氨酸激酶3 fms related receptor tyrosine kinase 3;ITGB1:整合素β1 integrin subunit beta 1;CDK2:细胞周期蛋白依赖性激酶2 cyclin dependent kinase 2;CHUK:核因子-κB抑制蛋白激酶α nuclear factor-kappa B inhibitor protein kinase alpha;MAPK14:丝裂原活化蛋白激酶14 mitogen-activated protein kinase 14;PSMB1:蛋白酶体β亚基1 proteasome 20s subunit beta 1;CAT:过氧化氢酶 catalase;DMT1:二价金属转运蛋白1 divalent metal transporter 1。图4图7同 the same as Fig.4 and Fig.7

Fig.3 PPI network diagram of rutin alleviating porcine intestinal damage in pigs

2.4 芦丁缓解猪肠道损伤核心靶点筛选

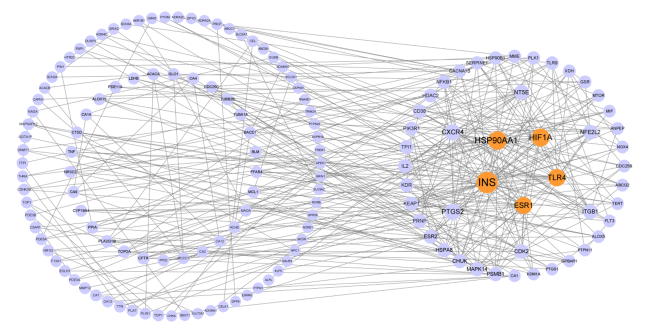
以点度中心性(degree)≥3、介度中心性(betweenness)≥83.37和接近中心性(closeness)≥0.29为参数对PPI网络进行过滤,得到枢纽靶点结果如图4所示,图中的节点越大,代表蛋白质与蛋白质相互的连接度越高,相互作用越紧密。最终确定了5个芦丁缓解猪肠道损伤的核心靶点,分别是胰岛素(insulin,INS)、热休克蛋白90αA1(heat shock protein 90 alpha family class A member 1,HSP90AA1)、缺氧诱导因子1α(hypoxia inducible factor 1 alpha,HIF1A)、Toll样受体4(Toll like receptor 4,TLR4)、雌激素受体1(estrogen receptor 1,ESR1),这些靶点可能直接或者间接在芦丁缓解猪肠道损伤中发挥着至关重要的作用。
图4 芦丁缓解猪肠道损伤的枢纽靶点

Fig.4 Hub targets of rutin in alleviating intestinal damage in pigs

2.5 GO功能富集分析

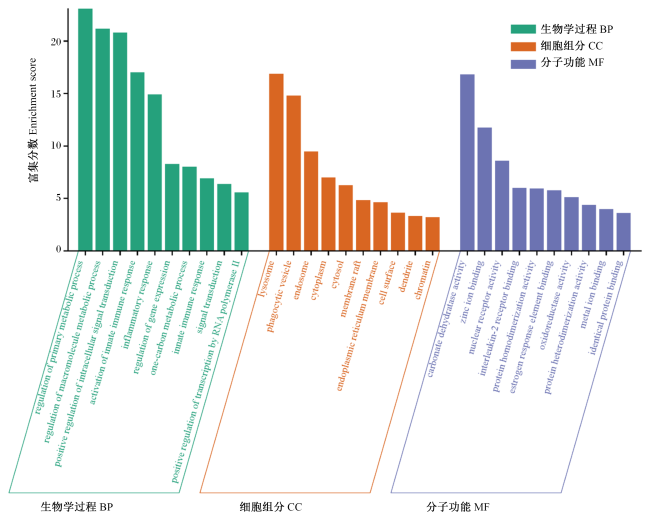
通过DAVID数据库对182个交集靶点进行GO功能富集分析,共获得1 274个条目,其中生物学过程(biological process,BP)170个、细胞组分(cellular component,CC)44个、分子功能(molecular function,MF)89个。将所有条目按P值升序排序后,筛选出排名前10的条目进行可视化分析,结果如图5所示。其中,BP主要包括3类过程:代谢相关(初级代谢、大分子代谢、单碳代谢)、免疫与炎症相关(先天免疫反应激活、炎症反应)以及信号与调控相关(信号转导、基因表达调控、转录正调控),这些过程在肠道损伤的发生和发展中均发挥关键作用。CC主要包括溶酶体、吞噬小泡、内质网膜等。MF主要包括碳酸酐酶活性、锌离子结合、核受体活性、白细胞介素-2受体结合、蛋白质同源二聚化活性、雌激素反应元件结合和氧化还原酶活性等。由此可见,芦丁缓解猪肠道损伤主要通过在酶学、信号转导、基因调控等过程中发挥重要作用而实现。
图5 GO功能富集分析

regulation of primary metabolic process:初级代谢过程调控;regulation of macromolecule metabolic process:大分子代谢过程调控;positive regulation of intracellular signal transduction:细胞内信号转导的正调控;activation of innate immune response:先天免疫反应激活;inflammatory response:炎症反应;regulation of gene expression:基因表达调控;one-carbon metabolic process:单碳代谢过程;innate immune response:先天免疫反应;signal transduction:信号转导;positive regulation of transcription by RNA polymerase Ⅱ:聚合酶Ⅱ介导转录的正调控;lysosome:溶酶体;phagocytic vesicle:吞噬小泡;endosome:内体;cytoplasm:细胞质;cytosol:细胞质基质;membrane raft:膜筏;endoplasmic reticulum membrane:内质网膜;cell surface:细胞表面;dendrite:树突;chromatin:染色质;carbonate dehydratase activity:碳酸酐酶活性;zinc ion binding:锌离子结合;nuclear receptor activity:核受体活性;interleukin-2 receptor binding:白细胞介素-2受体结合;protein homodimerization activity:蛋白质同源二聚化活性;estrogen response element binding:雌激素反应元件结合;oxidoreductase activity:氧化还原酶活性;protein heterodimerization activity:蛋白质异源二聚化活性;metal ion binding:金属离子结合;identical protein binding:相同蛋白质结合。

Fig.5 GO functional enrichment analysis

2.6 KEGG通路富集分析

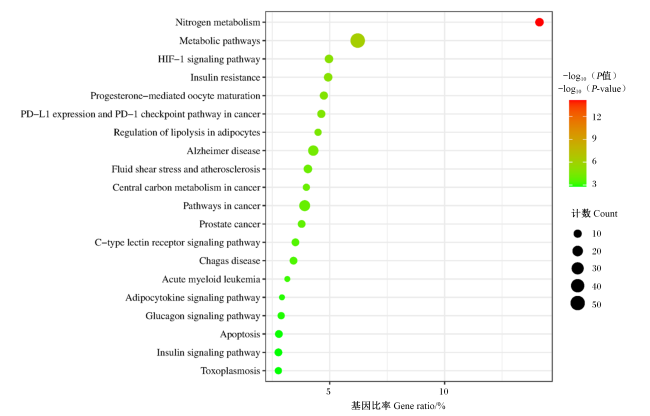
通过DAVID数据库对182个交集靶点进行KEGG通路富集分析,共获得97条通路,将所有通路按P值进行升序排序后,选择排名前30的通路进行可视化分析,结果如图6所示。分析表明,与芦丁缓解猪肠道损伤密切相关的通路主要包括C型凝集素受体信号通路、HIF-1信号通路、脂肪细胞因子信号通路、胰高血糖素信号通路等。
图6 KEGG通路富集分析

Nitrogen metabolism:氮代谢;Metabolic pathways:代谢通路;HIF-1 signaling pathway:HIF-1信号通路;Insulin resistance:胰岛素抵抗;Progesterone-mediated oocyte maturation:孕激素介导的卵母细胞成熟;PD-L1 expression and PD-1 checkpoint pathway in cancer:癌症中的PD-L1表达及PD-1免疫检查点通路;Regulation of lipolysis in adipocytes:脂肪细胞中脂解的调控;Alzheimer disease:阿尔茨海默病;Fluid shear stress and atherosclerosis:流体剪切力与动脉粥样硬化;Central carbon metabolism in cancer:癌症中的中心碳代谢;Pathways in cancer:癌症通路;Prostate cancer:前列腺癌;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;Chagas disease:查加斯病;Acute myeloid leukemia:急性髓系白血病;Adipocytokine signaling pathway:脂肪细胞因子信号通路;Glucagon signaling pathway:胰高血糖素信号通路;Apoptosis:细胞凋亡;Insulin signaling pathway:胰岛素信号通路;Toxoplasmosis:弓形虫病。

Fig.6 KEGG pathway enrichment analysis

2.7 芦丁-肠道损伤靶点-信号通路网络构建

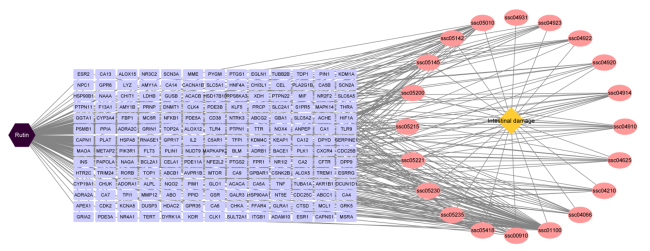
将KEGG通路富集分析结果与芦丁作用靶点和肠道损伤相关靶点的交集靶点进行整理,导入Cytoscape 3.8.0软件构建芦丁-肠道损伤靶点-信号通路网络模型(图7),图中KEGG通路名称对照表如表3所示。利用Network Analyze分析,结果显示,该网络模型包括204个节点和434条边。
图7 芦丁-肠道损伤靶点-信号通路网络模型

Rutin:芦丁;Intestinal damage:肠道损伤。

Fig.7 Rutin-intestinal damage targets-signaling pathway network model

表3 KEGG通路名称对照表

Table 3 KEGG pathway name reference table

编号 ID 描述 Description 编号 ID 描述 Description
ssc00910 氮代谢 Nitrogen metabolism ssc05200 癌症通路 Pathways in cancer
ssc01100 代谢通路 Metabolic pathways ssc05215 前列腺癌 Prostate cancer
ssc04066 HIF-1信号通路
HIF-1 signaling pathway
ssc04625 C型凝集素受体信号通路
C-type lectin receptor signaling pathway
ssc04931 胰岛素抵抗 Insulin resistance ssc05142 查加斯病 Chagas disease
ssc04914 孕激素介导的卵母细胞成熟
Progesterone-mediated oocyte maturation
ssc05221 急性髓系白血病
Acute myeloid leukemia
ssc05235 癌症中的PD-L1表达及PD-1
免疫检查点通路
PD-L1 expression and PD-1 checkpoint
pathway in cancer
ssc04920 脂肪细胞因子信号通路
Adipocytokine signaling pathway
ssc04923 脂肪细胞中脂解的调控
Regulation of lipolysis in adipocytes
ssc04922 胰高血糖素信号通路
Glucagon signaling pathway
ssc05010 阿尔茨海默病 Alzheimer disease ssc04210 细胞凋亡 Apoptosis
ssc05418 流体剪切力与动脉粥样硬化
Fluid shear stress and atherosclerosis
ssc04910 胰岛素信号通路
Insulin signaling pathway
ssc05230 癌症中的中心碳代谢
Central carbon metabolism in cancer
ssc05145 弓形虫病
Toxoplasmosis

2.8 分子对接验证结果

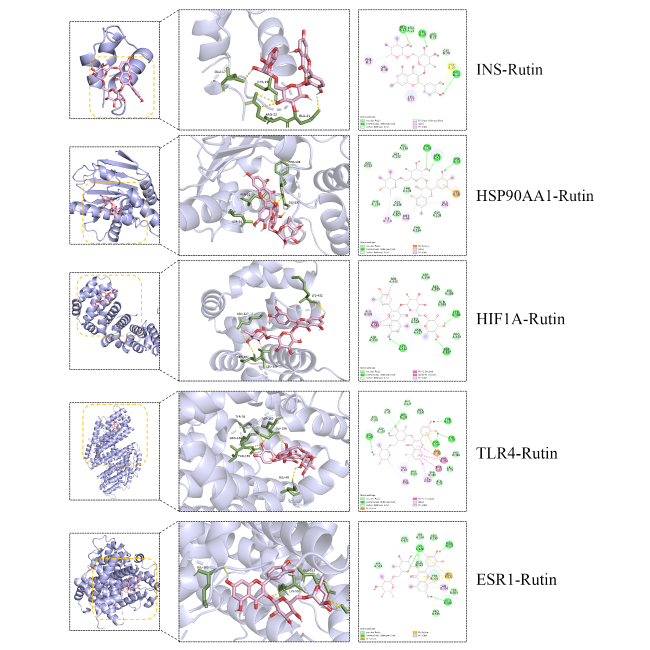
为了验证生物信息学分析预测芦丁缓解猪肠道损伤核心靶点的可靠性,采用分子对接技术预测芦丁与核心靶点的结合能力。以芦丁为配体,以INS、HSP90AA1、HIF1A、TLR4、ESR1为核心靶点受体进行分子对接模拟,并将对接结果进行可视化,结果如图8所示。分子对接中,结合能数值越低,表明配体与受体之间的结合能力越强。芦丁与各核心靶点的对接结合能如表4所示,结果显示,芦丁与5个核心靶点结合能数值均小于-20.92 kJ/mol,表明芦丁与上述核心靶点均具有较强的结合能力。
图8 芦丁与核心靶点的分子对接模型

INS-Rutin:胰岛素-芦丁 insulin-rutin;HSP90AA1-Rutin:热休克蛋白90αA1-芦丁 heat shock protein 90 alpha family class A member 1-rutin;HIF1A-Rutin:缺氧诱导因子1α-芦丁 hypoxia inducible factor 1 alpha-rutin;TLR4-Rutin:Toll样受体4-芦丁 Toll like receptor 4-rutin;ESR1-Rutin:雌激素受体1-芦丁 estrogen receptor 1-rutin。

Fig.8 Molecular docking models of rutin with core targets

表4 芦丁与各核心靶点的结合能

Table 4 Binding energies between rutin and each core target

核心靶点
Core targets
结合能
Binding energy/(kJ/mol)
Toll样受体4 TLR4 -38.07
热休克蛋白90αA1
HSP90AA1
-34.73
雌激素受体1 ESR1 -33.47
缺氧诱导因子1α HIF1A -32.22
胰岛素 INS -22.59

2.9 芦丁对IPEC-J2核心靶点基因表达的影响

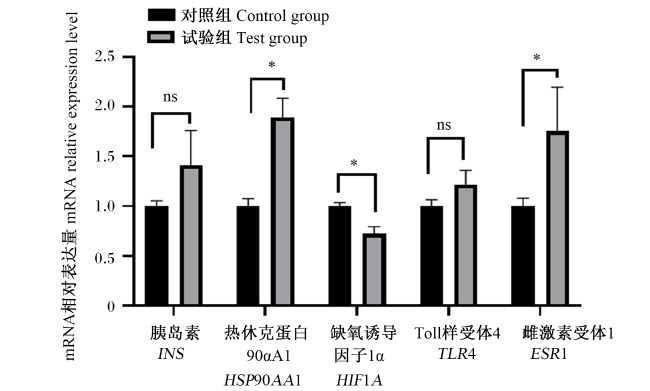
为了进一步探索芦丁对筛选出的核心靶点基因mRNA相对表达量的影响,利用RT-qPCR检测添加芦丁后IPEC-J2中相关基因的表达情况,结果如图9所示。与对照组相比,试验组中IPEC-J2的HSP90AA1和ESR1基因的mRNA相对表达量显著上升(P<0.05),HIF1A基因的mRNA相对表达量显著下降(P<0.05)。结果表明,添加芦丁能对筛选出的5个核心靶点基因中的3个基因的mRNA相对表达量产生显著影响。
图9 芦丁对筛选出的核心靶点基因表达的影响

“*”表示差异显著(P<0.05),“ns”表示差异不显著(P>0.05)。

Fig.9 Effects of rutin on expression of selected core target genes

“*” indicated a significant difference (P<0.05), and “ns” indicated no significant difference (P>0.05).

3 讨论

3.1 芦丁药代动力学特性

本研究中,芦丁的DL=0.68,表明其具有良好的类药性;但OB仅为3.20%,Caco2为-1.93,从理论层面分析,这表明芦丁可能肠道吸收性能很差,导致其口服利用度低。在网络药理学筛选中药材有效成分时,设置OB≥30%和DL≥0.18是常用的筛选条件[18-19]。有试验证实,在犬体内,芦丁与槲皮素的相对生物利用度并没有很明显的差异[20],然而通过TCMSP数据库获得的槲皮素OB为46.43%,该数据库结果与上述试验结论存在矛盾。目前,关于OB及DL指标的设立标准合理性尚缺乏进一步实证研究支持。目前,已有研究表明芦丁可被制成羟丙基甲基纤维素(HPMC)控释片、固体分散体、环糊精包合体以及共沉淀物的剂型,此类制剂可大大提高芦丁溶出速率,改善其生物利用度[21]

3.2 芦丁缓解猪肠道损伤核心靶点分析

本研究通过整合多个公共数据库,共得到357个芦丁作用靶点,14 729个肠道损伤相关靶点,取交集后获得182个交集靶点。PPI网络分析显示平均节点度为4.37,表明这些靶点之间存在密切的相互作用关系,而非依赖单一靶点发挥作用,而是形成了复杂的调控网络,这种网络特性使其能够系统性地缓解肠道损伤。
本研究中,芦丁缓解猪肠道损伤作用的核心靶点是INS、HSP90AA1、HIF1A、TLR4、ESR1。有研究表明,当小鼠缺氧应激72 h后,小鼠结肠组织中促炎因子白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)的mRNA相对表达量显著增高[22]。当发生肠道损伤时会引起强烈的氧化应激,通过抑制Wnt/β-连环蛋白(β-catenin)信号通路可以在体外和体内减弱肠道损伤[23]。HIF1A主要介导糖酵解增强和乳酸积累[24]。当肠道发生各种肠道损伤时微环境会增强HIF1A蛋白表达量,驱动下游促炎基因TNF-αIL-6的表达,从而放大炎症反应,加剧组织损伤[25]。研究表明,在结直肠癌中,HIF1A的表达量升高可通过2条非氧依赖途径驱动代谢:活性氧(ROS)介导的磷脂酰肌醇3激酶(PI3K)/蛋白激酶B(Akt)信号通路激活和Wnt/β-catenin信号通路的异常活化。这2条通路通过上调HIF1A表达,进而增强糖酵解和磷酸戊糖途径的代谢[26]。本研究的RT-qPCR结果清晰地显示,芦丁能够显著下调IPEC-J2中HIF1A基因的mRNA相对表达量。它强有力地证明了芦丁可能通过抑制HIF1A的转录,从上游阻断了肠道损伤中常见的“缺氧/应激-HIF1A-炎症”这一恶性循环。
TLR4不仅可以诱导机体产生天然免疫应答,而且可以促进特异性免疫反应的发生[27]。相关研究表明,TLR4信号通路功能障碍在炎症性肠病的发病机制中起着关键作用[28]。本研究中,芦丁与TLR4的结合能为-38.07 kJ/mol,预示芦丁与TLR4具有强烈的结合亲和力,但在转录水平上未观察到TLR4基因mRNA相对表达量的显著上调。然而,这种“不一致”暗示蛋白质与配体的结合并不总是导致该基因自身的转录激活。芦丁与TLR4的结合可能通过影响TLR4的稳定性、降解过程(如通过泛素化途径)等实现对TLR4的翻译后水平调控,但翻译后水平的调控需通过进一步试验进行验证。根据这一结果推测芦丁对TLR4的调控并非简单的促炎效应,而是一种免疫调节机制,这一发现初看似乎与抗炎作用相矛盾,因为TLR4通常被认为是促炎因子。然而,最新研究表明,TLR4在肠道稳态维持中具有双重作用。有研究对小鼠肠道TLR4敲除,结果显示肠道TLR4敲除后加重急性胰腺炎期间肠道屏障损伤和肠道有益菌失衡[29]。目前有研究表明,益生菌可通过激活TLR4信号通路缓解小鼠食物蛋白质过敏[30]。本研究结果推测,芦丁可能通过激活TLR4介导的保护性信号通路,进而发挥促进肠道损伤修复的作用。
肠道损伤必然伴随着剧烈的细胞应激,如内质网应激和蛋白质毒性应激[31]。HSP90AA1作为一种关键的分子伴侣,其负责维持正确的折叠和功能稳定[32]。本研究中,与对照组相比,芦丁能显著提高IPEC-J2中HSP90AA1基因的mRNA相对表达量,这说明芦丁通过增强细胞的蛋白质“质量控制”系统,帮助细胞更好地应对损伤带来的应激,从而提高细胞存活率[33]。此外,本研究中,与对照组相比,芦丁显著提高IPEC-J2中ESR1基因的mRNA相对表达量。雌激素信号已被证实能通过增强上皮紧密连接的稳定性,发挥维持肠道屏障的完整性的保护作用[34]。芦丁作为黄酮类化合物,其结构与雌激素具有相似性,可能通过激活ESR1发挥肠道保护作用。
肠道不仅是免疫器官,也是重要的代谢器官[35]。肠道损伤与能量代谢紊乱密切相关。本研究中,与对照组相比,IPEC-J2中INS基因的mRNA相对表达量的上调虽然未达到统计学显著性,但这一结果提示代谢调控在肠道损伤修复中的重要性。INS信号不仅调节糖代谢,还参与炎症调控[36]。在肠道中,INS信号可以促进肠道上皮细胞的能量供应;激活PI3K/AKT信号通路,促进细胞存活[37]。本研究筛选获得的核心靶点INS,及富集分析得到的INS信号通路、脂肪细胞因子信号通路等结果,共同提示芦丁对细胞代谢具有重要作用。

3.3 芦丁缓解猪肠道损伤的GO功能和KEGG通路富集分析

本研究中,GO功能富集分析结果清晰地展示了芦丁在代谢、免疫与炎症以及信号与调控3大生物学过程中的核心作用。KEGG通路富集分析识别的关键通路形成了一个相互关联的调控网络。其中,C型凝集素受体信号通路的富集表明,芦丁可能通过调节模式识别受体介导的免疫反应发挥作用,这一通路在识别病原体和损伤相关分子模式中起关键作用,其调控对于平衡促炎和抗炎反应至关重要。本研究中,HIF-1信号通路的富集与HIF1A基因的mRNA相对表达量下调的试验结果相呼应,进一步证实了代谢调控在芦丁作用机制中的核心地位。脂肪细胞因子信号通路的参与提示了代谢-炎症轴的重要性,脂肪细胞因子如脂联素具有抗炎和促进组织修复的作用。值得注意的是,多条癌症相关通路(如PD-L1表达和PD-1检查点通路)的富集可能反映了芦丁对细胞增殖和凋亡的调控作用。在肠道损伤修复过程中,适度的细胞增殖对于黏膜再生至关重要。

3.4 分子对接验证的结构基础

分子对接结果显示,5个核心靶点与芦丁的结合能均小于-20.92 kJ/mol,表明二者具有较好的结合亲和力。结构分析表明,芦丁的多羟基结构使其能够与靶蛋白形成多个氢键,而其糖基部分或能提供额外的特异性识别作用。这种高亲和力结合特征为芦丁的生物活性发挥提供了结构基础。
本研究的显著创新性在于,它并非局限于某一特定损伤模型,而是从“肠道损伤”的病理生理学共性特征出发,运用系统药理学策略,初步构建了芦丁维护猪肠道健康的分子作用网络,为后续验证天然产物的多靶点作用机制提供了参考。

4 结论

网络药理学和分子对接技术以及体外细胞试验结果表明,芦丁可通过与HSP90AA1、HIF1A、ESR1等核心靶点相互作用,协同调控C型凝集素受体信号通路、HIF-1信号通路、脂肪细胞因子信号通路、胰高血糖素信号通路等关键通路,进而发挥缓解猪肠道损伤的作用。
[1]
OECD/FAO. OECD-FAO agricultural outlook 2023-2032[M]. Paris: OECD Publishing, 2023.

[2]
XU L M, DU T R, LIU Q, et al. Genome-wide association study reveals new QTL and functional candidate genes for the small intestine length and cecum-colon length in Yorkshire pigs[J]. Journal of Animal Science, 2025,103:skaf085.

[3]
NEURATH M F, ARTIS D, BECKER C. The intestinal barrier:a pivotal role in health,inflammation,and cancer[J]. The Lancet Gastroenterology & Hepatology, 2025, 10(6):573-592.

[4]
LALLÈS J P, BOSI P, SMIDT H, et al. Weaning-a challenge to gut physiologists[J]. Livestock Science, 2007, 108(1/2/3):82-93.

DOI

[5]
PLUSKE J R. Feed- and feed additives-related aspects of gut health and development in weanling pigs[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):1.

DOI PMID

[6]
GRENIER B, APPLEGATE T J. Modulation of intestinal functions following mycotoxin ingestion:meta-analysis of published experiments in animals[J]. Toxins, 2013, 5(2):396-430.

DOI

[7]
TURNER J R. Intestinal mucosal barrier function in health and disease[J]. Nature Reviews Immunology, 2009, 9(11):799-809.

DOI PMID

[8]
XU J, JIA Z, XIAO S, et al. Enterotoxigenic Escherichia coli challenge on jejunal morphology and microbial community profiles in weaned crossbred piglets[J]. Microorganisms, 2023, 11(11):2646.

DOI

[9]
WINDISCH W, SCHEDLE K, PLITZNER C, et al. Use of phytogenic products as feed additives for swine and poultry[J]. Journal of Animal Science, 2008, 86(S14):E140-E148.

[10]
NIU Y, CHEN Y, LIU J, et al. Effect of diets supplemented with coated plant essential oil on the growth performance,immunity,antioxidant activity,and fecal microbiota of weaned piglets[J]. Frontiers in Veterinary Science, 2024, 11:1346922.

DOI

[11]
ZHAI H X, LIU H, WANG S K, et al. Potential of essential oils for poultry and pigs[J]. Animal Nutrition, 2018, 4(2):179-186.

DOI PMID

[12]
CAO S, WANG C, YAN J, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting Parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology and Medicine, 2020, 147:8-22.

DOI PMID

[13]
BAYAZID A B, LIM B O. Quercetin is an active agent in berries against neurodegenerative diseases progression through modulation of Nrf2/HO1[J]. Nutrients, 2022, 14(23):5132.

DOI

[14]
卢宁, 张宝. 芦丁的提取工艺、生物学功能及其在动物生产中的应用[J]. 饲料研究, 2023, 46(2):161-165.

LU N, ZHANG B. Extraction technology,biological function of rutin and its application in animal production[J]. Feed Research, 2023, 46(2):161-165. (in Chinese)

[15]
马龙飞, 周斌斌, 刘春雨, 等. 饲粮添加芦丁对断奶仔猪回肠形态结构和屏障功能的影响[J]. 畜牧与兽医, 2024, 56(2):7-14.

MA L F, ZHOU B B, LIU C Y, et al. Effects of dietary rutin on the morphology and barrier function of ileum in weaned piglets[J]. Animal Husbandry & Veterinary Medicine, 2024, 56(2):7-14. (in Chinese)

[16]
MA L F, ZHOU B B, LIU H J, et al. Dietary rutin improves the antidiarrheal capacity of weaned piglets by improving intestinal barrier function,antioxidant capacity and cecal microbiota composition[J]. Journal of the Science of Food and Agriculture, 2024, 104(10):6262-6275.

DOI

[17]
张佳琦, 熊玮, 黎智华, 等. 芦丁对断奶仔鼠生长、肠道抗氧化及脂代谢的影响[J]. 南京农业大学学报, 2022, 45(2):368-376.

ZHANG J Q, XIONG W, LI Z H, et al. Effects of rutin on growth,intestinal antioxidant capacity and lipid metabolism in weaned mice[J]. Journal of Nanjing Agricultural University, 2022, 45(2):368-376. (in Chinese)

[18]
ZHU H H, WANG S, SHAN C, et al. Mechanism of protective effect of xuan-bai-cheng-qi decoction on LPS-induced acute lung injury based on an integrated network pharmacology and RNA-sequencing approach[J]. Respiratory Research, 2021, 22(1):188.

DOI

[19]
LU Y, LUAN H P, PENG C, et al. Application of network pharmacology and dock of molecules on the exploration of the mechanism of frankincense-myrrh for lumbar intervertebral disc degeneration:a review[J]. Medicine, 2024, 103(29):e38953.

DOI

[20]
REINBOTH M, WOLFFRAM S, ABRAHAM G, et al. Oral bioavailability of quercetin from different quercetin glycosides in dogs[J]. British Journal of Nutrition, 2010, 104(2):198-203.

DOI

[21]
臧志和, 曹丽萍, 钟铃. 芦丁药理作用及制剂的研究进展[J]. 医药导报, 2007, 26(7):758-760.

ZANG Z H, CAO L P, ZHONG L. Research progress on pharmacological effects and preparations of rutin[J]. Herald of Medicine, 2007, 26(7):758-760. (in Chinese)

[22]
郑建华, 法云智, 董巧燕, 等. 高原急性缺氧肠道应激损伤小鼠模型的构建与评价[J]. 实验动物与比较医学, 2024, 44(1):31-41.

ZHENG J H, FA Y Z, DONG Q Y, et al. Construction and evaluation of a mouse model with intestinal injury by acute hypoxic stress in plateau[J]. Laboratory Animal and Comparative Medicine, 2024, 44(1):31-41. (in Chinese)

[23]
ZHU J X, DUN Y, WU W, et al. Curcumin suppresses the Wnt/β-catenin signaling pathway by inhibiting NKD2 methylation to ameliorate intestinal ischemia/reperfusion injury[J]. Kaohsiung Journal of Medical Sciences, 2024, 40(2):175-187.

DOI

[24]
LIAO Y F, LUO Z L, LIN Y F, et al. PRMT3 drives glioblastoma progression by enhancing HIF1A and glycolytic metabolism[J]. Cell Death & Disease, 2022, 13(11):943.

[25]
WU R Y, RUAN J H, SUN Y J, et al. Long non-coding RNA HIF1A-AS2 facilitates adipose-derived stem cells (ASCs) osteogenic differentiation through miR-665/IL6 axis via PI3K/Akt signaling pathway[J]. Stem Cell Research & Therapy, 2018, 9(1):348.

[26]
DONG S H, LIANG S, CHENG Z Q, et al. ROS/PI3K/Akt and Wnt/β-catenin signalings activate HIF-1α-induced metabolic reprogramming to impart 5-fluorouracil resistance in colorectal cancer[J]. Journal of Experimental & Clinical Cancer Research, 2022, 41(1):15.

[27]
FAN C Y, HUANG X Y, MEI J, et al. Macrophages form dendrite-like pseudopods to enhance bacterial ingestion[J]. EMBO Journal, 2025, 44(17):4772-4802.

DOI

[28]
DEJBAN P, NIKRAVANGOLSEFID N, CHAMANARA M, et al. The role of medicinal products in the treatment of inflammatory bowel diseases (IBD) through inhibition of TLR4/NF-κB pathway[J]. Phytotherapy Research, 2021, 35(2):835-845.

DOI

[29]
MEI Q X, FU Y, HUANG Z H, et al. Intestinal TLR4 deletion exacerbates acute pancreatitis through gut microbiota dysbiosis and Paneth cells deficiency[J]. Gut Microbes, 2022, 14(1):2112882.

DOI

[30]
TIAN X Y, LIANG X, HE H, et al. Probiotics alleviate food protein allergy in mice by activating TLR4 signaling pathway[J]. Molecular Nutrition & Food Research, 2023, 67(12):e2200579.

[31]
GALLUZZI L, YAMAZAKI T, KROEMER G. Linking cellular stress responses to systemic homeostasis[J]. Nature Reviews Molecular Cell Biology, 2018, 19(11):731-745.

DOI PMID

[32]
ZHANG M Y, MA L J, JIANG L, et al. Paeoniflorin protects against cisplatin-induced acute kidney injury through targeting Hsp90AA1-Akt protein-protein interaction[J]. Journal of Ethnopharmacology, 2023, 310:116422.

DOI

[33]
PICKLES S, VIGIÉ P, YOULE R J. Mitophagy and quality control mechanisms in mitochondrial maintenance[J]. Current Biology, 2018, 28(4):R170-R185.

[34]
SHIN S G, LEE J Y, CHOI J W, et al. Estrogen-related receptor alpha mitigates radiation-induced bowel injury through gut enrichment of Bacteroides vulgatus[J]. Gut Microbes, 2025, 17(1):2541020.

DOI

[35]
姬改革, 巨晓军, 单艳菊, 等. 笼养密度对公母分饲黄羽肉鸡生长性能、免疫器官发育、抗氧化能力、肠道组织形态及免疫相关基因mRNA表达的影响[J]. 动物营养学报, 2024, 36(4):2277-2291.

DOI

JI G G, JU X J, SHAN Y J, et al. Effects of cage density on growth performance,immune organ development,antioxidant capacity,intestinal tissue morphology and mRNA expression of immune-related genes of male and female separately-fed yellow-feathered broilers[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2277-2291. (in Chinese)

[36]
车开萱, 路明月, 邱俊强. 有氧运动防治肥胖相关胰岛素抵抗:以靶向炎症为视角[J]. 中国慢性病预防与控制, 2024, 32(10):790-795.

CHE K X, LU M Y, QIU J Q. Aerobic exercise for prevention and treatment of obesity-related insulin resistance:from the perspective of targeting inflammation[J]. Chinese Journal of Prevention and Control of Chronic Diseases, 2024, 32(10):790-795. (in Chinese)

[37]
GAO Y N, LIAO G Y, XIANG C X, et al. Effects of phycocyanin on INS-1 pancreatic β-cell mediated by PI3K/Akt/FOXO1 signaling pathway[J]. International Journal of Biological Macromolecules, 2016, 83:185-194.

DOI PMID

Outlines

/