RESEARCH PAPER

Probiotic Properties and Whole-Genomic Analysis of Bacillus subtilis DN3-1 Isolated from Diannan Small-Ear Pigs

  • LIU Chen , 1 ,
  • ZHANG Jiakun 1, * ,
  • LI Jiqin 1 ,
  • CHEN Shiyu 1 ,
  • LIN Qiuye 2 ,
  • XU Le , 1, 3, ** ,
  • CAO Zhenhui , 1, 3, **
Expand
  • 1 Faculty of Animal Science and Technology, Yunnan Agricultural University, Kunming 650201, China
  • 2 School of Ethnic Medicine, Yunnan Minzu University, Kunming 650504, China
  • 3 Key Laboratory of Animal Nutrition and Feed Science of Yunnan Province, Kunming 650201, China
**XU Le, lecturer, E-mail: ;
CAO Zhenhui, professor, E-mail:

*Contributed equally

Received date: 2025-08-21

  Online published: 2026-03-16

Abstract

This study aimed to analysis the probiotic properties and whole-genomic of Bacillus subtilis DN3-1 isolated from Diannan small-ear pigs, to provide a theoretical basis for its development as a probiotic feed additive. In vitro assays were performed to evaluate the acid tolerance, bile salts tolerance, adhesion capacity, enzyme production activity, antioxidant activity, antimicrobial activity, hemolytic activity and biogenic amine synthesis capability of Bacillus subtilis DN3-1, and the whole-genome sequencing was conducted to explore the its probiotic mechanisms and safety basis molecular. The results showed that the Bacillus subtilis DN3-1 whole-genome size was 4 121 215 bp, with a GC content of 43.73%, encoding 4 069 genes. No known virulence factor genes were detected in Bacillus subtilis DN3-1, and it exhibited no hemolytic activity and lacked the ability to synthesize cadaverine, putrescine, and agmatine. The Bacillus subtilis DN3-1 demonstrated strong tolerance to acid and bile salts, high surface hydrophobicity and auto-aggregation capacity, significant antioxidant and antimicrobial activities, and produced protease, lipase, amylase and cellulase. Genomic analysis identified multiple genes encoding potential antimicrobial secondary metabolites, alongside genes associated with acid tolerance, bile salt tolerance, adhesion and antioxidant. Collectively, the Bacillus subtilis DN3-1 is a promising candidate probiotic strain with significant potential for application as a microbial feed additive.

Cite this article

LIU Chen , ZHANG Jiakun , LI Jiqin , CHEN Shiyu , LIN Qiuye , XU Le , CAO Zhenhui . Probiotic Properties and Whole-Genomic Analysis of Bacillus subtilis DN3-1 Isolated from Diannan Small-Ear Pigs[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 2249 -2265 . DOI: 10.12418/CJAN2026.180

滇南小耳猪又名冬瓜猪,主要分布于云南省海拔800~1 300 m的热带、亚热带地区,属典型华南型猪种,具有抗逆性强、耐粗饲和肉品质优良等种质特性[1]。该猪种已于2011年经国家畜禽遗传资源委员会鉴定为我国特有地方猪种资源,收录于《中国畜禽遗传资源志(猪志)》[2]。与引进猪种相比,我国地方猪种在特殊生长环境与饲喂方式下形成了独特的肠道微生物群落结构[3]。因此,挖掘利用地方猪种具有益生潜力的肠道微生物资源,对开发新型饲用微生态制剂具有重要的理论价值和实际应用意义。
枯草芽孢杆菌(Bacillus subtilis,B.subtilis)作为一种广泛分布的革兰氏阳性好氧菌,具有强大的环境耐受性(耐热、耐酸、耐胆盐等)和良好的安全性,可分泌多种消化酶及次级代谢产物,在促进宿主营养物质消化吸收、增强免疫功能、维持肠道微生态平衡等方面发挥重要作用[4-6]。2013年我国农业农村部将枯草芽孢杆菌列入我国《饲料添加剂品种目录》(农业部公告第2045号),其在畜禽养殖、生物医药和食品工业等领域已得到广泛应用[7]
尽管针对不同来源枯草芽孢杆菌菌株的益生特性已有大量研究[8-11],但传统表型研究方法仍难以系统解析其复杂的生物学机制。随着高通量测序技术的发展,全基因组测序为系统揭示细菌的遗传背景、代谢潜能及益生机制提供了强有力的手段。基于此,本研究旨在探究滇南小耳猪源枯草芽孢杆菌DN3-1(以下简称为DN3-1)的益生特性,利用全基因组测序方法解析其潜在的益生功能分子机制,为开发DN3-1作为可用于畜禽健康养殖的新型微生态制剂提供理论依据。

1 材料与方法

1.1 菌株

DN3-1由本课题组从滇南小耳猪新鲜粪便中分离获得;金黄色葡萄球菌(Staphylococcus aureus,S. aureus)ATCC 49521、单核增生李斯特菌(Listeria monocytogenes,L. monocytogenes)BNCC336877、大肠杆菌(Escherichia coli,E. coli)K88和宋内氏志贺氏菌(Shigella sonnei,S. sonnei)CMCC51592为本课题组保藏菌株。

1.2 主要试剂与仪器

胰酪大豆胨(tryptic soy broth,TSB)培养基、胰酪大豆胨琼脂(tryptic soy agar,TSA)培养基、LB(Luria-Bertani)培养基购自广东环凯生物科技有限公司;10×磷酸盐缓冲液(phosphate-buffered saline,PBS)购自武汉赛维尔生物科技有限公司;牛胆盐、总抗氧化能力(total antioxidant capacity,T-AOC)检测试剂盒、羟自由基(HO·)清除能力检测试剂盒、1,1-二苯基-2-三硝基苯肼(1,1-diphenyl-2-picrylhydrazyl,DPPH)自由基清除能力检测试剂盒、还原型谷胱甘肽(reduced glutathione,GSH)含量检测试剂盒、超氧化物歧化酶(superoxide dismutase,SOD)活性检测试剂盒购自北京索莱宝科技有限公司;精氨酸脱羧酶、鸟氨酸脱羧酶、赖氨酸脱羧酶检测生化管购自杭州滨和微生物试剂有限公司。高速低温离心机(Thermo Fisher ST-16R)、全波长多功能酶标仪(Varioskan Flash)购自赛默飞世尔科技(中国)有限公司。

1.3 试验方法

1.3.1 全基因组测序及序列分析

将活化后的DN3-1(1%,V/V)接种至TSB培养基中,于37 ℃有氧条件下培养至对数生长期。随后以2 800×g离心10 min收集菌体,并用无菌PBS洗涤3次。采用基因组DNA提取试剂盒纯化菌株总DNA,所得DNA样品依次经过Nanodrop分光光度计、Qubit荧光定量仪进行浓度测定,并通过琼脂糖凝胶电泳评估其完整性。经质量验证合格后,使用BluePippin全自动核酸片段回收系统进行大片段DNA筛选纯化,并构建测序文库。文库制备完成后,分别采用Qubit荧光定量仪测定其浓度,利用Agilent 2100生物分析仪检测其片段大小分布。质量合格的文库分别在Pacific Biosciences Sequel Ⅱe三代测序平台和Illumina NovaSeq 6000二代测序平台上开展测序。
利用Hifiasm软件对三代长读长测序数据进行组装,采用Pilon v1.22软件,结合二代短读长测序数据对其进行纠错优化,以获得高精确度的完整基因组序列。使用Prodigal v2.6.3预测编码序列(CDS);利用RepeatMasker v4.1.4识别重复序列;基于上述组装与注释结果,运用Circos v0.69.6绘制基因组圈图。搜索京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)及碳水化合物活性酶(carbohydrate-active enzymes,CAZy)数据库,对预测的编码序列进行功能注释。

1.3.2 比较基因组分析

使用原核生物基因组和泛基因组分析平台(integrated prokaryotes genome and pan-genome analysis,IPGA)(v1.09)计算DN3-1与其他29株枯草芽孢杆菌之间的平均核苷酸同一性(average nucleotide identity,ANI),并构建泛-核心基因集。枯草芽孢杆菌基因组信息见表1
表1 枯草芽孢杆菌基因组信息

Table 1 Genomic information of B.subtilis

菌株
Strains
分离源
Isolation source
基因组大小
Genome size/Mb
GC含量
GC content/%
GenBank编号
GenBank ID
B.subtilis 168 4.2 43.5 GCA_000009045.1
B.subtilis 21855 猪属 Sus scrofa 4.2 43.5 GCA_028748025.1
B.subtilis BS21 猪属 Sus scrofa 4.8 44.0 GCA_029958885.1
B.subtilis QXKL-3 猪属 Sus scrofa 4.1 44.0 GCA_047302565.1
B.subtilis 23-1 原鸡 Gallus gallus 4.4 43.0 GCA_032878855.1
B.subtilis A1.2 原鸡 Gallus gallus 4.2 43.5 GCA_029625925.1
B.subtilis 0SU1015-21 原鸡 Gallus gallus 4.6 42.5 GCA_029350885.1
B.subtilis ZBAW6 1 原鸡 Gallus gallus 4.3 43.5 GCA_030846335.1
B.subtilis 1 牛属 Bos 4.3 43.5 GCA_027497435.1
B.subtilis JC1005 1 牛属 Bos 4.0 44.0 GCA_012926045.1
B.subtilis MS1577 BS1 牛属 Bos 4.3 43.5 GCA_001187765.1
B.subtilis N2-10 牛属 Bos 4.0 44.0 GCA_023702085.1
B.subtilis O4 牛属 Bos 4.2 43.5 GCA_026410045.1
B.subtilis TATVAM-FAB3 羊亚科 Caprinae 4.0 44.0 GCA_046592855.1
B.subtilis TATVAM-FAB32 羊亚科 Caprinae 4.0 43.5 GCA_046592575.1
B.subtilis TATVAM-FAB79 羊亚科 Caprinae 4.2 43.5 GCA_046591695.1
B.subtilis TATVAM-FAB85 羊亚科 Caprinae 4.0 43.5 GCA_046535715.1
B.subtilis 5-1 智人 Homo sapiens 4.0 43.5 GCA_010580645.1
B.subtilis 8-1 智人 Homo sapiens 4.0 43.5 GCA_010578225.1
B.subtilis ANA3 智人 Homo sapiens 4.0 44.0 GCA_038397795.1
B.subtilis EYE 54 智人 Homo sapiens 4.2 43.5 GCA_023148545.1
B.subtilis MRD-ZNGN 智人 Homo sapiens 4.0 44.0 GCA_045275325.1
B.subtilis SF106 智人 Homo sapiens 4.0 43.5 GCA_025452155.1
B.subtilis TLO3 智人 Homo sapiens 4.1 43.5 GCA_002290305.1
B.subtilis ZL27 智人 Homo sapiens 4.0 43.5 GCA_003762825.1
B.subtilis MENO2 蜜蜂属 Apis 4.1 44.0 GCA_009497795.1
B.subtilis TV1 蜜蜂属 Apis 4.1 43.5 GCA_010912695.1
B.subtilis DSM 28592 小鼠属 Mus 4.2 43.0 GCA_024623085.1
B.subtilis MG-1 水貂 Neovison vison 4.4 43.5 GCA_026153475.1

B.subtilis:枯草芽孢杆菌 Bacillus subtilis

1.3.3 细菌素和次级代谢产物合成基因簇预测

通过antiSMASH在线平台(https://antismash.secondarymetabolites.org)预测DN3-1潜在的天然产物生物合成基因簇。

1.3.4 毒力和耐药基因检索分析

利用毒力因子数据库(virulence factors database,VFDB)v20240301注释DN3-1基因组中的毒力因子相关基因,并通过综合抗生素耐药性数据库(comprehensive antibiotic resistance database,CARD)v3.2.9识别抗生素耐药基因。参照我国农业农村部发布的《微生物直接饲喂和发酵产品中所用菌株的鉴定与安全性评估指南》[12],设定注释可靠性阈值:相似性≥80%,序列覆盖度≥70%,E值<10-5

1.3.5 耐酸、耐胆盐能力测定

将TSB培养基经稀盐酸(0.1 mol/L)调节至目标pH(2.0、3.0、4.0),接种1%(V/V)活化后的DN3-1菌液,于37 ℃、150 r/min有氧振荡培养。分别于0、1、2和3 h收集菌液,经梯度稀释后,取100 μL涂布TSA培养基,37 ℃培养24 h后统计活菌数,按公式计算存活率,每组试验重复3次。在TSB培养基中添加牛胆盐至终浓度0.1%、0.2%和0.3%,接种1%(V/V)活化后的DN3-1菌液,按照上述方法测定0、1、2和3 h的存活率,每组试验重复3次。存活率计算公式如下:
存活率(%)=(Nt/N0)×100。
式中:N0为初始活菌数;Nt为处理t h后活菌数。

1.3.6 黏附能力测定

将DN3-1过夜培养后,5 000×g、4 ℃离心10 min收集菌体,用PBS洗涤2次并重悬至1×10⁸ CFU/mL,并记录600 nm处吸光度(A0)。取2 mL菌悬液与2 mL二甲苯混合,涡旋5 min,静置30 min分层后测定水相600 nm处吸光度(A1),以计算疏水率,每组试验重复3次,计算公式如下:
疏水率(%)=[1-(A1/A0)]×100。
将DN3-1过夜培养后,5 000×g、4 ℃离心10 min收集菌体,用PBS洗涤2次并重悬至1×10⁸ CFU/mL。涡旋混匀10 s,37 ℃静置孵育。分别于0(A0)和3 h(A2)取上层200 μL悬液测定600 nm处吸光度,以计算自聚集率,每组试验重复3次,计算公式如下:
自聚集率(%)=[1-(A2/A0)]×100。

1.3.7 产酶能力测定

蛋白酶、脂肪酶、淀粉酶和纤维素酶发酵培养基参照陈来凤等[13]的方法配制。采用活化后的DN3-1分别接种(接种量5%,V/V)于蛋白酶、淀粉酶及纤维素酶发酵培养基(37 ℃、150 r/min,培养48 h)和脂肪酶发酵培养基(37 ℃、150 r/min,培养72 h)。发酵完成后,经离心(10 000×g,10 min)收集上清液,测定胞外酶活性,每组试验重复3次。蛋白酶活性参照GB/T 28715—2012[14]的方法进行测定,脂肪酶活性采用对硝基苯酚法[15]进行测定,淀粉酶活性采用3,5-二硝基水杨酸(DNS)比色法[16]进行测定,纤维素酶活性采用GB/T 23881—2009[17]的方法进行测定。

1.3.8 抗氧化活性测定

将活化后的DN3-1按1%(V/V)接种量接种于TSB培养基中,于37 ℃、150 r/min振荡培养8 h。培养结束后,5 000×g离心10 min,分离发酵上清液和菌体沉淀。菌体经PBS缓冲液(pH 6.8)洗涤2次后,用相同缓冲液重悬并调整至1×10⁸ CFU/mL。采用超声破碎仪(功率300 W,工作3 s,间隔5 s,总时长15 min)处理菌悬液,4 ℃、8 000×g离心15 min后收集上清,制备无细胞提取物。分别取发酵上清液和无细胞提取物,按照相应试剂盒说明书测定总抗氧化能力、超氧化物歧化酶活性、还原型谷胱甘肽含量、DPPH自由基清除率及羟自由基清除率,每组试验重复3次。

1.3.9 抑菌活性测定

将活化后的DN3-1菌液按1%(V/V)接种量转接至TSB培养基中过夜培养,收集发酵液于8 000×g离心15 min,取上清液备用。将E. coliS. aureusS. sonneiL. monocytogenes分别以0.5%(V/V)的接种量加入LB固体培养基,混匀后倾注至放置有牛津杯的培养皿中。待培养基凝固后取出牛津杯,在所形成的孔中加入200 μL无菌上清液。37 ℃培养24 h后,测量抑菌圈直径,每组试验重复3次。

1.3.10 生物胺产生能力检测

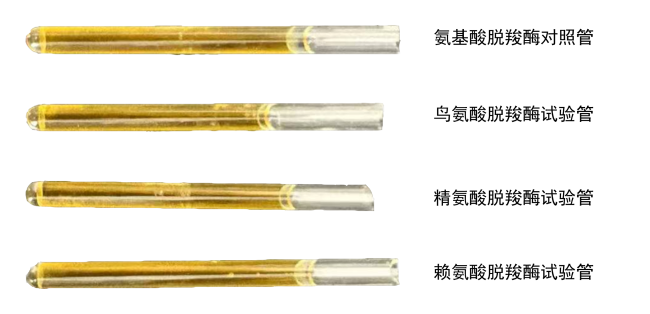
挑取DN3-1单菌落接种至氨基酸空白对照管以及鸟氨酸、精氨酸和赖氨酸脱羧酶试验管中,37 ℃培养24 h后观察颜色变化。当试验管与阴性对照管均呈黄色时判定为菌株相应氨基酸脱羧酶阴性;若对照管呈黄色而试验管呈紫色,则判定为菌株相应氨基酸脱羧酶阳性,表明菌株具有相应氨基酸脱羧酶活性,能够产生腐胺、胍丁胺或尸胺。

1.3.11 溶血活性检测

将无菌滤纸片(直径6 mm)紧贴于哥伦比亚血琼脂平板表面,分别吸取20 μL的DN3-1菌液(1×10⁸ CFU/mL)和阳性对照菌株(S. aureus NBRC 100910)悬液(1×10⁸ CFU/mL)滴加于滤纸片上。37 ℃恒温培养24 h后,观察并记录溶血环形成情况。阳性判定标准为出现完全透明的β-溶血环,部分溶血(α-溶血)或无明显溶血环(γ-溶血)均判定为阴性结果。

1.4 数据统计与分析

试验数据采用SPSS 25.0统计软件进行分析。采用t检验进行2组间差异比较,多组间差异比较先进行单因素方差分析(one-way ANOVA),方差分析显著时进一步用Duncan氏法进行多重比较。数据均以平均值±标准差(mean±SD)表示,以P<0.05为差异具有统计学意义。

2 结果与分析

2.1 比较基因组分析

2.1.1 ANI比较

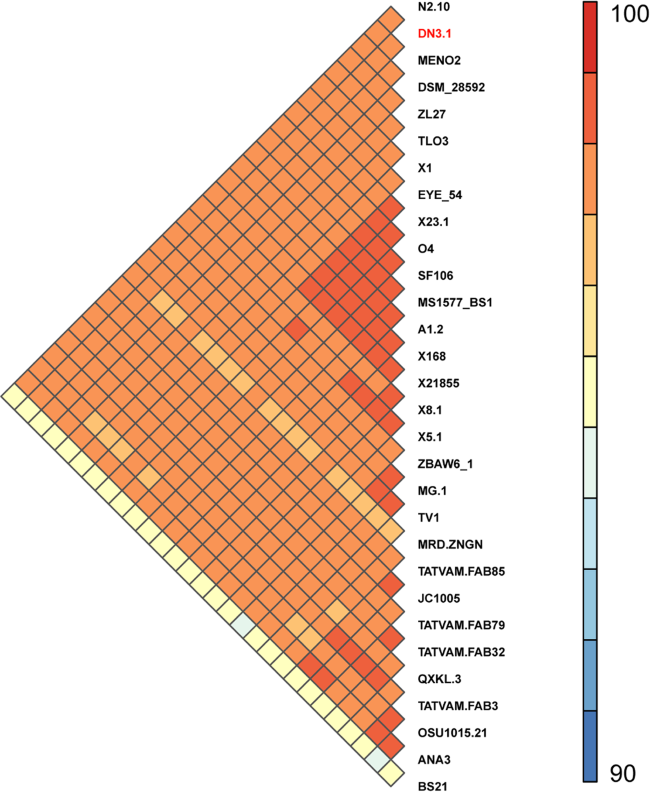
采用ANI对DN3-1与29株不同来源的枯草芽孢杆菌进行了全基因组水平的亲缘关系分析。由图1可知,所有参比菌株的ANI值均大于95%。根据目前普遍认可的微生物物种界定标准(ANI>95%为同种),该结果充分证实了DN3-1的分类学地位确属于枯草芽孢杆菌。
图1 ANI分析和全基因组的系统发育树

Fig.1 ANI analysis and whole-genome phylogenetic tree

2.1.2 泛基因和核心基因组分析

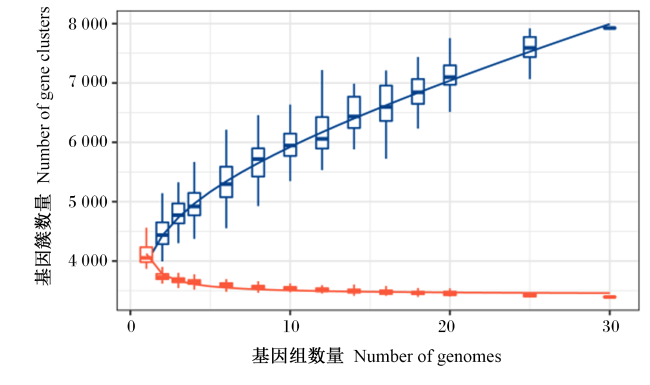
基于29株不同来源的枯草芽孢杆菌及DN3-1的基因组数据,构建了泛基因组(pan-genome)并进行系统分析。结果表明,该泛基因组共包含7 926个基因簇,其中核心基因簇3 393个,约占42.8%,而特有基因簇4 053个,占比达51.1%。由图2可知,随着菌株数量的增加,泛基因组数量持续扩大,而核心基因组数量逐渐趋于稳定,符合典型的开放式基因组特征。
图2 泛基因组和核心基因组曲线

Fig.2 Pan-genome and core-genome curves

2.2 DN3-1全基因组测序与分析

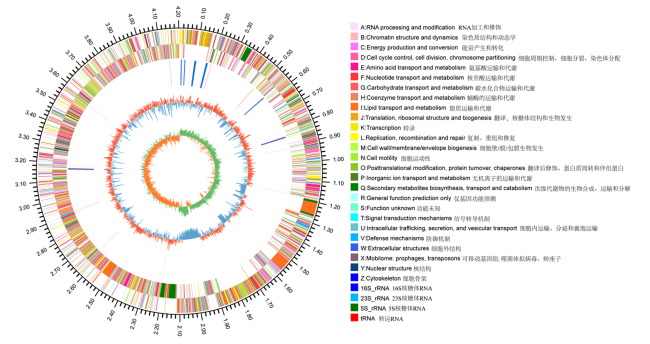
通过全基因组测序和生物信息学分析,本研究获得了DN3-1的完整基因组序列。由图3可知,该基因组由1条环状染色体组成,全长4 121 215 bp,未检测到质粒存在。基因组GC含量为43.73%,共编码4 069个基因。由表2所示,DN3-1基因组中含有2个完整的前噬菌体序列以及3个转座子元件。该菌株序列已提交至NCBI数据库,登录号为PRJNA1307751。
图3 DN3-1基因组组成圈图

第1圈:基因组大小;第2、3圈:正链、负链上的编码序列(CDS),不同的颜色表示CDS不同的直系同源簇(COG)的功能分类;第4圈:rRNA和tRNA;第5圈:GC含量,红色表示该区域GC含量高于全基因组平均GC含量,峰值越高表示与平均GC含量差值越大,蓝色表示该区域GC含量低于全基因组平均GC含量,峰值越高表示与平均GC含量差值越大;第6圈:GC-Skew值。

Fig.3 Genome composition circle map of DN3-1

Circle 1: genome size; circles 2 and 3: coding sequences (CDS) on the positive and negative chains, different colors indicate the functional classification of CDS with different clusters of orthologous groups (COGs); circle 4: rRNA and tRNA; circle 5: GC content, the red indicates that the GC content in the region is higher than the average GC content of the whole genome, and the higher the peak value indicates the greater the difference with the average GC content, the blue indicates that the GC content in the region is lower than the average GC content of the whole genome, and the higher the peak value indicates the greater the difference with the average GC content; circle 6: GC-Skew value.

表2 DN3-1基因组特征

Table 2 DN3-1 genomic characterization

基因组信息 Genomic information 结果 Result
长度 Length/bp 4 121 215
GC含量 GC content/% 43.73
编码基因总数 Total number of coding genes/个 4 069
rRNA数量 rRNA number/个 30
tRNA数量 tRNA number/个 85
sRNA数量 sRNA number/个 91
前噬菌体 Prophage/bp
前噬菌体1 Prophage 1 1 295 948~1 324 116
前噬菌体2 Prophage 2 2 061 095~2 081 306
转座子 Transposon/bp
转座子1 Transposon 1 1 620 100~1 620 363
转座子2 Transposon 2 2 186 477~2 186 896
转座子3 Transposon 3 2 187 893~2 188 255

2.3 DN3-1基因功能注释分析

2.3.1 KEGG功能注释

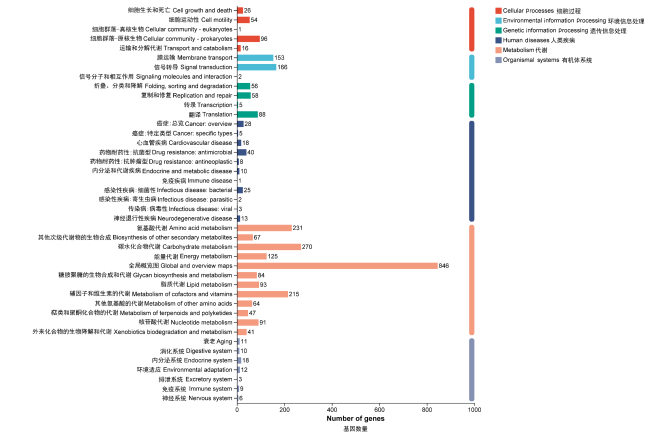
图4可知,DN3-1的编码基因经KEGG功能注释显示,其基因主要分布于6大类:代谢(metabolism)、人类疾病(human diseases)、有机体系统(organismal systems)、细胞过程(cellular processes)、遗传信息处理(genetic information processing)及环境信息处理(environmental information processing)。在代谢相关基因中,全局概览图的基因数量最多(846个),其次为碳水化合物代谢(270个)、氨基酸代谢(231个)及辅因子与维生素的代谢(215个)。在人类疾病相关基因中,药物耐药性:抗菌型的基因数量最多(40个)。在有机体系统相关基因中,内分泌系统的基因数量最多(18个)。在细胞过程相关基因中,细胞群落-原核生物的基因数量最多(96个)。在遗传信息处理相关基因中,翻译的基因数量为多(88个)。在环境信息处理相关基因中,信号转导的基因数量最多(166个)。以上结果表明,DN3-1具有广泛的代谢潜能及环境适应性。
图4 KEGG分类功能统计

Fig.4 KEGG classification function statistics

2.3.2 CAZy功能注释分析

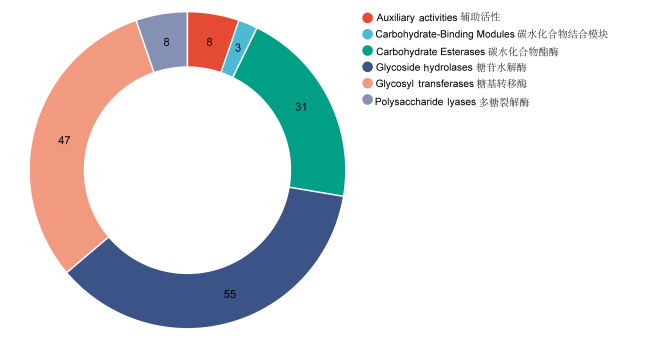
图5可知,DN3-1共编码152个碳水化合物活性酶基因,分布于71个基因家族。其中,糖苷水解酶(glycoside hydrolases,GHs)家族基因数量最多(55个),其次为糖基转移酶(glycosyl transferases,GTs)家族(47个)和碳水化合物酯酶(carbohydrate esterases,CEs)家族(31个);多糖裂解酶(polysaccharide lyases,PLs)家族(8个)、辅助活性酶(auxiliary activities,AAs)家族(8个)以及碳水化合物结合模块(carbohydrate-binding modules,CBMs)家族(3个)基因数量相对较少。
图5 CAZy分类统计

Fig.5 CAZy classification statistics

2.4 毒力和耐药基因注释

表3可知,基于VFDB和CARD数据库的基因组分析表明,DN3-1含有13个符合《直接饲喂微生物和发酵制品生产菌株鉴定及其安全性评价指南》要求的耐药基因,未检出毒力因子相关基因。
表3 DN3-1 CARD注释结果

Table 3 Annotation results of CARD for DN3-1

基因编号
Gene No
ARO名称
ARO name
抗生素类型
Type of antibiotics
基因位点
Genetic locus/bp
gene0133 Bacillus subtilis rpoB mutants conferring
resistance to rifampin
利福平 121 458~125 039
gene0303 lmrB 林可酰胺类 280 110~329 825
gene0897 Bacillus subtilis mprF 达托霉素 893 059~895 629
gene2404 bmr 吖啶类、氟喹诺酮类、
氯霉素类、嘌呤霉素
2 372 130~2 373 299
gene0613 vmlR 林可霉素、链阳霉素A 590 382~592 028
gene2628 blt 罗丹明类、吖啶类、氟喹诺酮类 2 566 443~2 567 645
gene2657 aadK 链霉素 2 593 789~2 594 643
gene1395 ykkD 氨基糖苷类、苯酚类、四环素类 1 353 705~1 354 022
gene0288 mphK 大环内酯类 265 885~266 805
gene0350 tmrB 核苷类 329 232~329 825
gene1394 ykkC 氨基糖苷类、苯酚类、四环素类 1 353 367~1 353 705
gene0139 Enterococcus faecium EF-Tu mutants
conferring resistance to GE2270A
GE2270A 132 421~133 611
gene4120 tet(L) 四环素类 4 066 024~4 067 400

2.5 DN3-1的生物胺产生能力

图6可知,脱羧酶活性检测结果表明,DN3-1的鸟氨酸、精氨酸和赖氨酸脱羧酶试验管与对照管均呈现黄色反应,判定为阴性结果。以上结果表明,DN3-1不产生腐胺、胍丁胺和尸胺。
图6 DN3-1的生物胺产生能力

Fig.6 Biogenic amine production ability of DN3-1

2.6 DN3-1的溶血活性

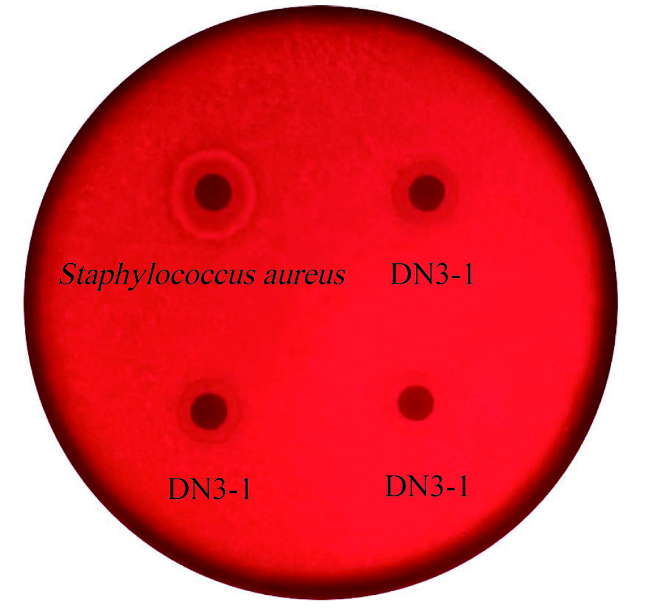
图7可知,阳性对照S. aureus呈现β-溶血特征(形成明显无色透明溶血圈),而DN3-1未观察到溶血现象(γ-溶血)。以上结果表明,DN3-1不具有溶血活性。
图7 DN3-1的溶血活性

Staphylococcus aureus:金黄色葡萄球菌。

Fig.7 Hemolytic property of DN3-1

2.7 DN3-1的益生特性相关基因分析

表4可知,DN3-1含有不同的耐酸相关基因、耐胆盐相关基因、黏附相关基因及抗氧化相关基因。
表4 DN3-1的益生特性相关基因

Table 4 Genes related to probiotic characteristics of DN3-1

基因位置
Gene locations
基因名
Gene name
定义
Definition
酸耐受性 Acid resistance
gene3713 atpA ATP合酶F1亚基α
gene3717 atpB F0F1 ATP合酶A亚基
gene3710 atpC F0F1 ATP合酶ε亚基
gene3711 atpD F0F1 ATP合酶β亚基
gene3716 atpE F0F1 ATP合酶C亚基
gene3715 atpF F0F1 ATP合酶B亚基
gene3712 atpG ATP合酶F1亚基γ
gene3714 atpH F0F1 ATP合酶δ亚基
gene3718 atpI ATP合酶Ⅰ亚基
gene1042、gene2356 nhaC 钠离子(Na+)/氢离子(H+)逆向转运蛋白NhaC
gene1387 arcA 精氨酸脱亚胺酶
gene3352 arcD 精氨酸-鸟氨酸反向转运蛋白/赖氨酸通透酶
胆盐耐受性 Bile salt resistance
gene3763 argS 精氨酰-tRNA合成酶
gene3052、gene3315 dps 饥饿诱导型DNA结合蛋白
gene1841 glnA 谷氨酰胺合成酶
gene0272、gene3520 nagB 葡糖胺-6-磷酸脱氨酶
gene1214 oppA 寡肽运输系统底物结合蛋白
gene1225 pepF 寡肽内肽酶F
gene2450 pepP Xaa-Pro氨肽酶
gene4101 ppaC 锰依赖性无机焦磷酸酶
黏附性 Adhesion
gene0139 tuf 延伸因子Tu
gene0793、gene0833、
gene2490、gene3355
ltaS 脂磷壁酸合酶
gene3885 dltA D-丙氨酸-聚磷酸核糖醇连接酶亚基1
gene3886 dltB 参与D-丙氨酸输出的膜蛋白
gene3887 dltC D-丙氨酸-聚磷酸核糖醇连接酶亚基2
gene3889 dltE 未鉴定的氧化还原酶
抗氧化性 Oxidative resistance
gene4047、gene4048 ahpC 还原型烟酰胺腺嘌呤二核苷酸(NADH)依赖性
过氧还蛋白亚基C
gene4048 ahpF NADH依赖性过氧还蛋白亚基F
gene0364、gene3225 Fnr 铁氧还蛋白/黄素氧还蛋白-烟酰胺腺嘌呤二核
苷磷酸(NADP+)还原酶
gene0506、gene0601、gene1515、
gene2836、gene3293
trxA 硫氧还蛋白1
gene2294、gene3497 trxB 硫氧还蛋白还原酶(NADP+型)
gene2938 tpx 硫氧还蛋白依赖性过氧还蛋白
gene2886 nrdR 转录阻遏蛋白NrdR
gene1958 ggt γ-谷氨酰转肽酶/谷胱甘肽水解酶
gene2186 btuE 谷胱甘肽过氧化物酶
gene2387 zwf 葡萄糖-6-磷酸-1-脱氢酶
gene0451 pxpA 5-氧代脯氨酸酶(ATP水解型)亚基A

2.8 次级代谢产物基因簇预测

表5可知,基于antiSMASH分析预测,DN3-1基因组含有11个次级代谢产物生物合成基因簇。其中,5个基因簇与已知功能基因簇高度相似(相似度达100%),分别编码杆菌烯、泛革素、杆菌霉素、枯草菌素A和杆溶菌素;而表面活性素合成基因簇相似度达82%。此外,鉴定出1个三型聚酮合酶基因簇,其与已知基因簇相似度为16%。
表5 次级代谢产物合成区域鉴定结果

Table 5 Identification results of secondary metabolite synthesis region

基因位点
Genetic locus/bp
产物类型
Product type
最相似产物
Most similar
product
相似度
Similarity/%
来源
Source
348 576~413 964 非核糖体多肽类 表面活性素 82 贝莱斯芽孢杆菌FZB42
514 192~540 511 羊毛硫肽-Ⅲ类 - -
1 125 408~1 146 214 萜烯 - -
1 739 100~1 853 889 反式AT型酮聚合酶;三型聚酮
合酶;非核糖体多肽类
杆菌烯 100 贝莱斯芽孢杆菌FZB42
1 922 096~1 999 845 非核糖体多肽类;β内酯 泛革素 100 贝莱斯芽孢杆菌FZB42
2 104 061~2 125 959 萜烯 - -
2 174 418~2 215 515 三型酮聚合酶 碳青霉烯-3-羧酸 16 胡萝卜软腐坚固杆菌
3 120 157~3 171 934 非核糖体多肽金属载体;
非核糖体多肽类
杆菌霉素 100 贝莱斯芽孢杆菌 FZB42
3 699 577~3 721 188 塞克肽类 枯草菌素A 100 枯草芽孢杆菌斯氏亚种
ATCC 6633
3 724 162~3 765 580 其他 杆溶菌素 100 贝莱斯芽孢杆菌FZB42
3 967 682~3 987 951 核糖体合成和翻译后修饰的
多肽(RiPP)识别元件
- - -

“-”代表该基因簇在数据库中尚未比对到同源序列。

“-” means the gene cluster has not been identified in the database.

2.9 DN3-1的耐酸、耐胆盐能力

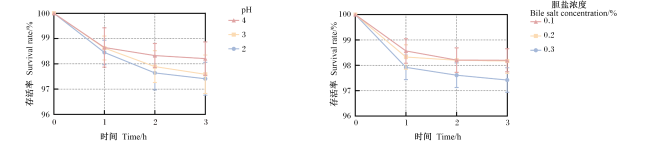
图8可知,DN3-1在不同pH(2.0、3.0和4.0)和胆盐浓度(0.1%、0.2%和0.3%)条件下均表现出良好的耐受性,存活率均保持在97%以上。在同一时间点时,不同pH和不同胆盐浓度下菌株的存活率均无显著差异(P>0.05)。以上结果表明,DN3-1具有良好的耐酸和耐胆盐特性,为其在胃肠道环境中的存活和应用提供了重要保障。
图8 DN3-1的耐酸和耐胆盐能力

数据无字母标识表示差异不显著(P>0.05)。

Fig.8 Acid tolerance and bile salt tolerance ability of DN3-1

Values with no letter identification mean no significant difference (P>0.05).

2.10 DN3-1的黏附性能

表6可知,DN3-1的疏水率为(88.83±1.92)%,自聚集率为(68.06±1.75)%。以上结果表明,DN3-1表现出优异的表面疏水性和自聚集能力。
表6 DN3-1的黏附性能

Table 6 Adhesion performance of DN3-1

项目 Items 结果 Result
疏水率 Hydrophobicity ratio 88.83±1.92
自聚集率 Auto-aggregation ratio 68.06±1.75

2.11 DN3-1的产酶能力

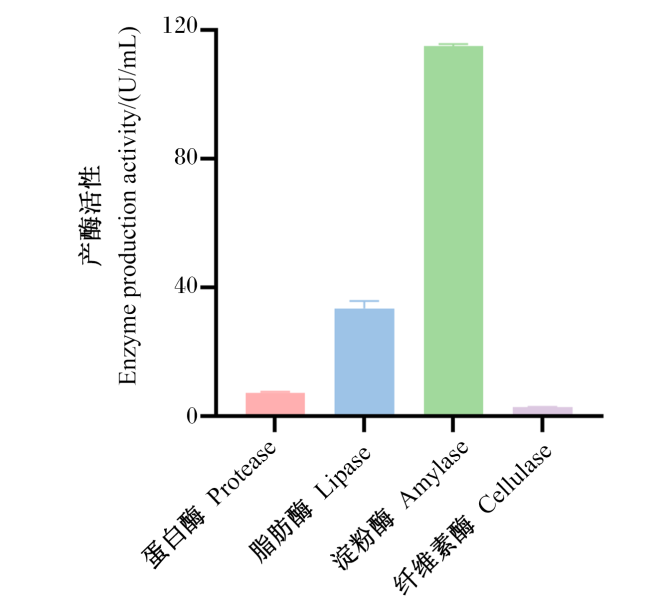
图9可知,DN3-1具有蛋白酶[(7.21±0.39) U/mL]、脂肪酶[(33.46±2.29) U/mL]、淀粉酶[(114.94±0.70) U/mL]及纤维素酶[(2.76±0.08) U/mL]活性。以上结果表明,DN3-1表现出多种酶活性特征。
图9 DN3-1的产酶能力

Fig.9 Enzyme production performance of DN3-1

2.12 DN3-1的抗氧化性能

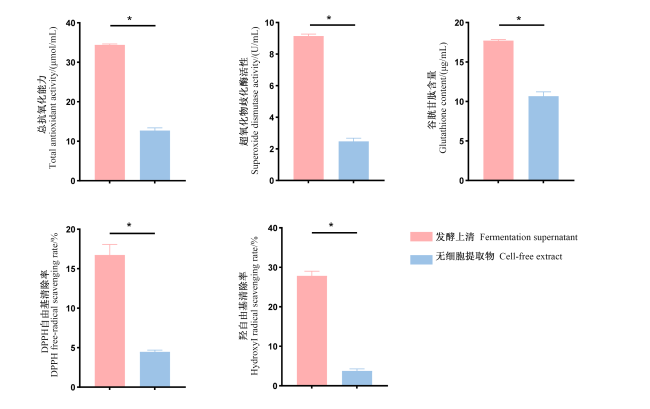
图10可知,DN3-1发酵上清液和无细胞提取物均表现出抗氧化活性。DN3-1发酵上清液的总抗氧化能力、超氧化物歧化酶活性、还原型谷胱甘肽含量、DPPH自由基清除率及羟自由基清除率均显著高于无细胞提取物(P<0.05)。
图10 DN3-1的抗氧化性能

*表示差异显著(P<0.05)。

Fig.10 Antioxidant performance of DN3-1

* indicated significant difference (P<0.05).

2.13 DN3-1发酵上清液的抑菌能力

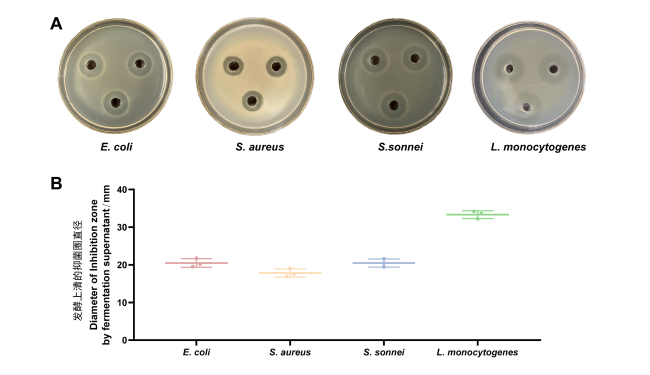
图11可知,DN3-1发酵上清液对多种致病菌表现出优异的抑菌活性,DN3-1发酵上清液对E. coliS. aureusS.sonneiL. monocytogenes的抑菌圈直径分别为(20.49±1.13) mm、(17.83±1.09) mm、(20.48±1.08) mm和(33.33±1.03) mm。
图11 DN3-1发酵上清液的抑菌能力

A:DN3-1的抑菌效果;B:DN3-1发酵上清液的抑菌圈直径。A: antibacterial effect of DN3-1; B: diameter of inhibition zone by fermentation supernatant of DN3-1.

E. coli:大肠杆菌 Escherichia coli; S. aureus:金黄色葡萄球菌 Staphylococcus aureus;S. sonnei:宋内氏志贺氏菌 Shigella sonnei;L. monocytogenes:单核增生李斯特菌 Listeria monocytogenes

Fig.11 Antibacterial ability of fermentation supernatant of DN3-1

3 讨论

联合国粮农组织(FAO)和世界卫生组织(WHO)将益生菌定义为“适量摄入时对宿主健康有益的活微生物”[18]。利用地方猪种独特的肠道微生物资源,对开发新型饲料添加剂具有重要意义。本研究对DN3-1的益生特性及全基因组进行了系统分析,以期为开发新型微生物饲料添加剂提供理论依据。
益生菌的安全性评估是其临床应用和工业化开发的重要前提[19]。本研究结果显示,DN3-1在血琼脂平板上未表现出溶血活性,同时缺乏鸟氨酸、精氨酸和赖氨酸脱羧酶活性,这表明该菌株既不具备破坏宿主红细胞的能力,也不会产生腐胺、胍丁胺和尸胺等具有潜在毒性的生物胺。全基因组测序分析进一步证实,DN3-1不携带任何已知的毒力因子或致病相关基因。值得注意的是,虽然检测到13个耐药相关基因,但这些基因均定位于染色体上,且其基因组环境分析显示周围不存在前噬菌体、转座子等可移动遗传元件,表明其发生水平基因转移的风险极低[20]。综合表型和基因型分析结果,DN3-1展现出良好的安全特性,为其作为益生菌的进一步开发应用提供了重要的安全性基础。
具备一定的耐胃酸和耐胆盐能力是益生菌能够在体内发挥作用的重要前提,因而耐酸和耐胆盐特性成为了筛选益生菌的重要标准之一[21]。本研究发现,DN3-1对酸和胆盐耐受能力均高于97%,优于郑凯天等[22]从贵州香猪新鲜粪便中分离得到的枯草芽孢杆菌BSC43,表明该菌株具备良好的胃肠道环境耐受特性。KEGG数据库注释表明,DN3-1的基因组包含完整的F型氢离子(H+)/钠离子(Na+)转运ATP酶系统(atpA-atpI基因)。质子泵通过ATP水解排出细胞内多余的H+,从而维持细胞质pH稳态[23]。DN3-1中F型H+/Na+转运ATP酶系统的完整性确保了其在酸性条件下的高存活率。DN3-1基因组中鉴定到精氨酸脱亚氨基酶途径(arginine deiminase pathway,ADI)的关键基因(如arcAarcD)。其中,arcA基因编码的精氨酸脱氨酶可通过产氨中和环境酸度并提供能量,表明该菌株在不利环境(如酸性胁迫)下可能通过激活ADI途径增强其耐酸能力[24]
在胆盐耐受性方面,nagB基因编码的GlcN-6-P脱氨酶可通过调控N-乙酰葡糖胺(N-acetylglucosamine,NAG)代谢网络影响肽聚糖合成,从而动态调节细胞壁合成与修复速率,形成抵御胆盐的物理屏障[25]。此外,蛋白酶(pepFpepOpepP)通过水解肽链释放必需氨基酸促进修复蛋白质合成,可能协同ppaC编码的焦磷酸酶水解焦磷酸所驱动的能量供应,共同维持细胞壁损伤修复能力,从而增强菌株抵御胆盐渗透的物理屏障完整性[26-27]。而DNA结合蛋白dps能够拮抗胆汁诱导的氧化性DNA损伤[28]。多种耐酸和耐胆盐相关基因的存在,可能保证了DN3-1在胃肠道中的高存活率。
细菌的疏水性及自聚集能力与其黏附特性密切相关,是益生菌发挥功能的重要生理基础[29]。本研究发现,DN3-1表现出优良的表面疏水性和自聚集能力。进一步分析显示,DN3-1基因组中存在tuf基因,其编码的延伸因子EF-Tu可作为黏附素,可能介导菌体与宿主细胞的初始黏附,为定植过程提供分子基础[30]。此外,DN3-1携带完整的脂磷壁酸(LTA)合成相关基因,包括编码脂磷壁酸合成酶的ltaS基因以及dlt操纵子基因。在革兰氏阳性菌中,LTA作为细胞壁关键组分,通过分子间相互作用增强细菌对宿主细胞的黏附。其中,ltaS基因主导LTA的合成,而dlt操纵子基因则通过调节LTA上D-丙氨酸的修饰程度,改变细胞表面净电荷,削弱静电排斥以增强黏附[31-32]。这些遗传特征共同构成了DN3-1优异的黏附能力基础,为其潜在的益生功能提供了分子机制解释。
抗氧化活性是益生菌适应宿主体内环境、发挥益生功能以及应对生态竞争的重要基础[33]。本研究发现,DN3-1的发酵上清液和无细胞提取物均表现出抗氧化活性。DN3-1基因组中存在硫氧还蛋白系统(trxAtrxB)以及谷胱甘肽抗氧化系统(zwfbtuEggt)相关基因。其中,硫氧还蛋白系统可通过向硫醇依赖性过氧化物酶供电子而快速清除活性氧[34]。而在还原型谷胱甘肽的代谢过程中,zwf可通过提供烟酰胺腺嘌呤二核苷酸磷酸参与维持细胞内还原型谷胱甘肽的适当水平,btuE利用还原型谷胱甘肽进行抗氧化等反应并加速其氧化还原循环[35-36];同时,ggt表达的酶分解胞外的还原型谷胱甘肽,产生氨基酸前体被细胞吸收,进而用于胞内还原型谷胱甘肽的再合成[37]。此外,过氧化物酶系统中的ahpCahpF基因,可通过清除过氧化物,保护细胞免受氧化损伤[38]。菌株自身强大的抗氧化系统不仅保障了其在宿主肠道氧化环境中的生存,其分泌的抗氧化物质还可能被宿主肠道细胞利用或直接清除宿主肠道内的过量活性氧,从而减轻宿主因环境应激(如高温)、疾病或饲粮因素引起的肠道氧化损伤,维护肠道屏障功能[33]
分泌抑菌物质是益生菌抵抗病原菌、发挥其益生作用的重要机制之一[39]。本研究证实,DN3-1具有广谱抗菌作用,即对革兰氏阳性致病菌(S. aureusL. monocytogenes)和革兰氏阴性致病菌(E. coliS. sonnei)均表现出明显的生长抑制作用,其中对S. aureusL. monocytogenesE. coli的抑制效果均强于枯草芽孢杆菌BSC43[22]。这一特性表明DN3-1可能通过分泌细菌素或其他抗菌代谢产物,从而抑制致病菌生长繁殖。基于antiSMASH的生物信息学分析表明,DN3-1基因组中含有6个编码潜在抑菌活性次级代谢产物的生物合成基因簇,其中与杆菌烯、泛革素、杆菌霉素、枯草菌素A以及杆溶菌素的相似度均达到100%,这些次级代谢产物可通过多种分子机制发挥抑菌作用。其中,杆菌烯通过抑制蛋白质合成干扰病原菌生长,泛革素和杆菌霉素作为脂肽类物质能够破坏细胞膜完整性,枯草菌素A增加细胞膜通透性以裂解细菌,而杆溶菌素则通过特异性干扰来抑制细菌细胞壁肽聚糖的合成[40-44]。这些基因簇的存在为解释DN3-1表现出的广谱抑菌活性提供了分子基础,也表明该菌株可能通过多靶点、多机制的协同作用实现对病原菌的有效抑制。这种抑菌能力使得DN3-1作为饲料添加剂具有替代或减少抗生素使用的潜力,直接保护猪只免受肠道病原侵袭,降低腹泻等疾病发生率,从而提高猪群健康水平和生产效益。
益生菌可通过分泌多种消化酶增强宿主的营养吸收功能[45]。本研究发现,DN3-1可分泌淀粉酶和纤维素酶。与袁林等[46]从仔猪粪便中分离的枯草芽孢杆菌GZ-0107、GZ-0183和SR-096相比,DN3-1表现出更高的淀粉酶活性,但其纤维素酶活性相对较低,这可能是由于菌株对不同碳源利用的代谢调控机制存在偏好。通过CAZy数据库预测到DN3-1基因组存在丰富的GHs和GTs家族基因。GHs可以以内切或外切方式水解各种含糖化合物(包括单糖苷、寡糖、多糖、皂甙和糖蛋白等)中的糖苷键,生成单糖、寡糖或糖复合物[47]。而GTs是一类能够催化活化糖供体向蛋白质、脂质、碳水化合物及其他小分子等多种受体转移糖基的酶,可参与糖蛋白、糖脂和多糖的合成[48]。这表明DN3-1具备强大的碳水化合物代谢潜能。笔者推测DN3-1可能通过分泌淀粉酶分解饲料淀粉,通过分泌纤维素酶等GHs直接降解植物细胞壁纤维素,产生可利用糖类。这种高效的碳水化合物分解能力,一方面提升饲料能量与营养物质的利用率,支持宿主生长;另一方面其降解产物(如短链脂肪酸)可为肠上皮细胞供能,维持肠道酸性健康环境并抑制病原菌[49]。因此,DN3-1的CAZy酶谱可能构成了滇南小耳猪长期进化中适应粗放饲养、形成耐粗饲特性的重要微生物学基础。DN3-1所蕴含的CAZy潜能为开发提升畜禽粗饲料利用效率的益生菌制剂提供了重要候选资源。

4 结论

滇南小耳猪源DN3-1是一株安全且具有优良益生潜力的菌株,其安全性体现在无溶血活性、不产生有害生物胺、未携带毒力因子,且耐药基因的传播风险低。在益生功能上,DN3-1具备强大的胃肠环境耐受性、优异的黏附能力、显著的抗氧化与广谱抑菌活性,并能分泌多种消化酶。DN3-1全基因组分析结果进一步从分子层面揭示了其上述特性的基础,鉴定出大量与耐受、黏附、抗氧化相关的功能基因,丰富的次级代谢产物合成基因簇,以及多样的碳水化合物酶编码基因。因此,DN3-1展现出作为饲用微生态制剂的良好开发前景。
[1]
鲍国樱, 余行, 王孝义, 等. 散养云南地方猪源乳酸菌分离、鉴定及其益生特性的研究[J]. 动物营养学报, 2023, 35(8):5418-5429.

DOI

BAO G Y, YU H, WANG X Y, et al. Isolation,identification and probiotic characteristics of lactic acid bacteria derived from free range local pigs in Yunnan province[J]. Chinese Journal of Animal Nutrition, 2023, 35(8):5418-5429. (in Chinese)

[2]
国家畜禽遗传资源委员会. 中国畜禽遗传资源志(猪志)[M]. 北京: 中国农业出版社, 2011.

China National Commission of Animal of Genetic Resource. Animal genetic resources in China:pigs[M]. Beijing: China Agriculture Press, 2011. (in Chinese)

[3]
石宝明, 鲍嘉欣, 赵轩. 中国地方猪种肠道微生物功能发掘与利用的研究进展[J]. 动物营养学报, 2022, 34(10):6281-6290.

DOI

SHI B M, BAO J X, ZHAO X. Research progress on exploitation and utilization of intestinal microbial function in Chinese native pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6281-6290. (in Chinese)

DOI

[4]
NICHOLSON W L, MUNAKATA N, HORNECK G, et al. Resistance of Bacillus endospores to extreme terrestrial and extraterrestrial environments[J]. Microbiology and Molecular Biology Reviews, 2000, 64(3):548-572.

DOI

[5]
ZOU X Y, ZHANG M, TU W J, et al. Bacillus subtilis inhibits intestinal inflammation and oxidative stress by regulating gut flora and related metabolites in laying hens[J]. Animal, 2022, 16(3):100474.

DOI

[6]
LIU S Q, CAI P R, YOU W J, et al. Enhancement of gut barrier integrity by a Bacillus subtilis secreted metabolite through the GADD45A-Wnt/β-catenin pathway[J]. iMeta, 2025, 4(2):e70005.

DOI

[7]
饲料添加剂品种目录(2013)[J]. 中华人民共和国农业部公报, 2014(1):61-63.

Catalogue of feed additive varieties(2013)[J]. Bulletin of the Ministry of Agriculture of the People’s Republic of China, 2014(1):61-63. (in Chinese)

[8]
许智强. 猪源枯草芽孢杆菌G2B9-Q发酵条件优化及应用潜力评估[D].硕士学位论文. 长春: 吉林大学, 2023.

XU Z Q. Optimization of fermentation conditions and evaluation of application potential of Bacillus subtilis G2B9-Q from pigs[D].Master’s Thesis. Changchun: Jilin University, 2023. (in Chinese)

[9]
辛国芹, 汪祥燕, 宁慧宇, 等. 猪源枯草芽孢杆菌BL-Y9益生特性研究及小鼠安全试验[J]. 中国饲料, 2021(7):38-43.

XIN G Q, WANG X Y, NING H Y, et al. Study on probiotic characteristics of Bacillus subtilis BL-Y9 from swine and safety test in mice[J]. China Feed, 2021(7):38-43. (in Chinese)

[10]
吕紫一, 张新博, 王红志, 等. 一株鸡源枯草芽孢杆菌的分离鉴定及其对雏鸡腹泻的保护作用[J/OL]. 畜牧兽医学报, 2025:1-14(2025-05-21)[2025-08-01]. https://link.cnki.net/urlid/11.1985.S.20250521.1331.004.html.

LV Z Y, ZHANG X B, WANG H Z, et al. Isolation and identification of a chicken source Bacillus subtilis strain and its protective effect on diarrhea in chicks[J/OL]. Acta Veterinaria et Zootechnica Sinica, 2025:1-14(2025-05-21)[2025-08-01]. https://link.cnki.net/urlid/11.1985.S.20250521.1331.004.html. (in Chinese)

[11]
李永健, 张润泽, 吴忧, 等. 羊源枯草芽孢杆菌分离鉴定及益生特性分析[J]. 中国畜牧兽医, 2025, 52(4):1590-1602.

DOI

LI Y J, ZHANG R Z, WU Y, et al. Isolation,identification and probiotic characteristics analysis of Bacillus subtilis from sheep[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(4):1590-1602. (in Chinese)

[12]
中华人民共和国农业农村部. 农业农村部办公厅关于印发《直接饲喂微生物和发酵制品生产菌株鉴定及其安全性评价指南》的通知[J]. 中华人民共和国农业农村部公报, 2021(11):97-111.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China. Notice from the general office of the ministry of agriculture and rural affairs on the issuance of the guidelines for identification and safety evaluation of strains used in direct feeding of microorganisms and fermented products[J]. Gazette of the Ministry of Agriculture and Rural Affairs of the People’s Republic of China, 2021(11):97-111. (in Chinese)

[13]
陈来凤, 周金萍, 徐巽, 等. 易门豆豉中芽孢杆菌分离筛选及产酶特性研究[J]. 中国酿造, 2024, 43(3):102-108.

DOI

CHEN L F, ZHOU J P, XU X, et al. Isolation,screening and enzyme-producing characteristics of Bacillus from Yimen Douchi[J]. China Brewing, 2024, 43(3):102-108. (in Chinese)

[14]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料添加剂酸性、中性蛋白酶活力的测定分光光度法:GB/T28715—2012[S]. 北京: 中国标准出版社, 2012.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Determinationofacidicandneutralproteaseactivityinfeedadditives-spetrophotometricmethod:GB/T28715—2012[S]. Beijing: Standards Press of China, 2012.

[15]
FATHI F, MOBARAK QAMSARI E, KASRA KERMANSHAHI R, et al. Optimization of lipase production by a newly isolate of Lactobacillus fermentum[J]. Iranian Journal of Science and Technology,Transactions A:Science, 2022, 46(4):1103-1113.

DOI

[16]
DASH B K, RAHMAN M M, SARKER P K. Molecular identification of a newly isolated Bacillus subtilis BI19 and optimization of production conditions for enhanced production of extracellular amylase[J]. BioMed Research International, 2015, 2015(1):859805.

[17]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲用纤维素酶活性的测定滤纸法:GB/T23881—2009[S]. 北京: 中国标准出版社, 2009.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Determinationoffeedcellulaseactivity-filterpaperassaymethod:GB/T23881—2009[S]. Beijing: Standards Press of China, 2009.

[18]
Food and Agriculture Organization of the United Nations, World Health Organization. Guidelines for the evaluation of probiotics in food[R]. London: Food and Agriculture Organization of the United Nations, 2002.

[19]
SANDERS M E, AKKERMANS L M A, HALLER D, et al. Safety assessment of probiotics for human use[J]. Gut Microbes, 2010, 1(3):164-185.

DOI PMID

[20]
OLSEN N S, RIBER L. Metagenomics as a transformative tool for antibiotic resistance surveillance:highlighting the impact of mobile genetic elements with a focus on the complex role of phages[J]. Antibiotics, 2025, 14(3):296.

DOI

[21]
史文凤, 安美玲, 黄丽丽, 等. 基于比较基因组学对新疆地区人源嗜黏蛋白阿克曼氏菌遗传差异及益生特性的比较分析[J]. 食品科学, 2025, 46(20):142-152.

SHI W F, AN M L, HUANG L L, et al. Comparative genomic analysis of the genetic differences and probiotic characteristics of human-residential Akkermansia muciniphila strains in Xinjiang[J]. Food Science, 2025, 46(20):142-152. (in Chinese)

[22]
郑凯天, 许英蕾, 熊约飞, 等. 1株产纤维素酶猪源性枯草芽孢杆菌的筛选鉴定及其对仔猪生长性能、体液免疫的影响[J]. 中国畜牧杂志, 2024, 60(4):214-219.

ZHENG K T, XU Y L, XIONG Y F, et al. Screening,identification of a cellulase-producing Bacillus subtilis from swine and its effects on growth performance and humoral immunity in weaned piglets[J]. Chinese Journal of Animal Science, 2024, 60(4):214-219. (in Chinese)

[23]
ZHAROVA T V, GRIVENNIKOVA V G, BORISOV V B. F1·Fo ATP synthase/ATPase:contemporary view on unidirectional catalysis[J]. International Journal of Molecular Sciences, 2023, 24(6):5417.

DOI

[24]
MAGHNOUJ A, DE SOUSA CABRAL T F, STALON V, et al. The arcABDC gene cluster,encoding the arginine deiminase pathway of Bacillus licheniformis,and its activation by the arginine repressor argR[J]. Journal of Bacteriology, 1998, 180(24):6468-6475.

DOI

[25]
AFZAL M, SHAFEEQ S, MANZOOR I, et al. N-acetylglucosamine-mediated expression of nagA and nagB in Streptococcus pneumoniae[J]. Frontiers in Cellular and Infection Microbiology, 2016, 6:158.

[26]
ZHANG H X, XU M F, HU S H, et al. The enzyme gene expression of protein utilization and metabolism by Lactobacillus helveticus CICC 22171[J]. Microorganisms, 2022, 10(9):1724.

DOI

[27]
GARCÍA-CONTRERAS R, DE LA MORA J, MORA-MONTES H M, et al. The inorganic pyrophosphatases of microorganisms:a structural and functional review[J]. PeerJ, 2024, 12:e17496.

DOI

[28]
HAMON E, HORVATOVICH P, IZQUIERDO E, et al. Comparative proteomic analysis of Lactobacillus plantarum for the identification of key proteins in bile tolerance[J]. BMC Microbiology, 2011, 11(1):63.

DOI

[29]
吕秀莉, 岳莹雪, 平丽筠, 等. 益生菌黏附机制及其拮抗肠道致病菌研究进展[J]. 食品科学, 2023, 44(9):313-320.

LV X L, YUE Y X, PING L J, et al. Research progress on the adhesion mechanism and antagonistic effects against intestinal pathogens of probiotics[J]. Food Science, 2023, 44(9):313-320. (in Chinese)

DOI

[30]
XIAO L Y, PU Y Y, CUI Y, et al. Elongation factor Tu promotes the onset of periodontitis through mediating bacteria adhesion[J]. NPJ Biofilms and Microbiomes, 2025, 11(1):47.

DOI PMID

[31]
BEACHEY E H, SIMPSON W A. The adherence of group a streptococci to oropharyngeal cells:the lipoteichoic acid adhesin and fibronectin receptor[J]. Infection, 1982, 10(2):107-111.

DOI

[32]
FAOZIA S, HOSSAIN T, CHO K H. The Dlt and LiaFSR systems derepress SpeB production independently in the Δpde2 mutant of Streptococcus pyogenes[J]. Frontiers in Cellular and Infection Microbiology, 2023, 13:1293095.

DOI

[33]
FENG T, WANG J. Oxidative stress tolerance and antioxidant capacity of lactic acid bacteria as probiotic:a systematic review[J]. Gut Microbes, 2020, 12(1):1801944.

DOI

[34]
JOMOVA K, ALOMAR S Y, ALWASEL S H, et al. Several lines of antioxidant defense against oxidative stress:antioxidant enzymes,nanomaterials with multiple enzyme-mimicking activities,and low-molecular-weight antioxidants[J]. Archives of Toxicology, 2024, 98(5):1323-1367.

DOI

[35]
SANDOVAL J M, ARENAS F A, VÁSQUEZ C C. Glucose-6-phosphate dehydrogenase protects Escherichia coli from tellurite-mediated oxidative stress[J]. PLoS One, 2011, 6(9):e25573.

DOI

[36]
MIAO Y C, LIU J, WANG X L, et al. Fatty acid feedstocks enable a highly efficient glyoxylate-TCA cycle for high-yield production of β-alanine[J]. mLife, 2022, 1(2):171-182.

DOI PMID

[37]
ZHANG H Q, FORMAN H J, CHOI J. γ-glutamyl transpeptidase in glutathione biosynthesis[J]. Methods in Enzymology, 2005, 401:468-483.

[38]
SI M R, HU M D, YANG M F, et al. Characterization of oxidative stress-induced cgahp,a gene coding for alkyl hydroperoxide reductase,from industrial importance Corynebacterium glutamicum[J]. Biotechnology Letters, 2023, 45(10):1309-1326.

DOI

[39]
RUEDA-ROBLES A, RODRÍGUEZ-LARA A, MEYERS M S, et al. Effect of probiotics on host-microbiota in bacterial infections[J]. Pathogens, 2022, 11(9):986.

DOI

[40]
MÜLLER S, STRACK S N, HOEFLER B C, et al. Bacillaene and sporulation protect Bacillus subtilis from predation by Myxococcus xanthus[J]. Applied and Environmental Microbiology, 2014, 80(18):5603-5610.

DOI

[41]
WANG Y Y, ZHANG C Y, LIANG J, et al. Surfactin and fengycin B extracted from Bacillus pumilus W-7 provide protection against potato late blight via distinct and synergistic mechanisms[J]. Applied Microbiology and Biotechnology, 2020, 104(17):7467-7481.

DOI

[42]
ZHANG B, DONG C J, SHANG Q M, et al. New insights into membrane-active action in plasma membrane of fungal hyphae by the lipopeptide antibiotic bacillomycin L[J]. Biochimica et Biophysica Acta, 2013, 1828(9):2230-2237.

DOI PMID

[43]
THENNARASU S, LEE D K, POON A, et al. Membrane permeabilization,orientation,and antimicrobial mechanism of subtilosin A[J]. Chemistry and Physics of Lipids, 2005, 137(1/2):38-51.

DOI

[44]
吴黎明, 李曦, 伍辉军, 等. 芽胞杆菌抗菌二肽溶杆菌素的研究进展[J]. 南京农业大学学报, 2018, 41(5):778-783.

WU L M, LI X, WU H J, et al. Research advances on bacilysin from Bacillus[J]. Journal of Nanjing Agricultural University, 2018, 41(5):778-783. (in Chinese)

[45]
张宇诺, 王玮. 益生菌通过重构肠道微生态减轻肥胖[J]. 中南大学学报(医学版), 2024, 49(7):1042-1051.

ZHANG Y N, WANG W. Probiotics in reducing obesity by reconfiguring the gut microbiota[J]. Journal of Central South University (Medical Science), 2024, 49(7):1042-1051. (in Chinese)

[46]
袁林, 涂熠坤, 曾静, 等. 猪源枯草芽孢杆菌的分离鉴定及其生物特性研究[J]. 中国兽医杂志, 2019, 55(5):9-13.

YUAN L, TU Y K, ZENG J, et al. Isolation and identification of a swine origin Bacillus subtilis and study of biological characteristic[J]. Chinese Journal of Veterinary Medicine, 2019, 55(5):9-13. (in Chinese)

[47]
周洁. Sphingomonas sp.ATCC31555家族3糖苷水解酶的功能研究及Fn3_like结构域的功能初探[D].博士学位论文. 南宁: 广西大学, 2022.

ZHOU J. Functional analysis on glycoside hydrolases of GH3 family from Sphingomonas sp.ATCC 31555 and the preliminary exploration of the function of Fn3_like domain[D].Ph.D.Thesis. Nanning: Guangxi University, 2022. (in Chinese)

[48]
GENG A, JIN M, LI N N, et al. New insights into the co-occurrences of glycoside hydrolase genes among prokaryotic genomes through network analysis[J]. Microorganisms, 2021, 9(2):427.

DOI

[49]
GAO Q T, SUN G M, DUAN J J, et al. Alterations in gut microbiota improve SCFA production and fiber utilization in Tibetan pigs fed alfalfa diet[J]. Frontiers in Microbiology, 2022, 13:969524.

DOI

Outlines

/