RESEARCH PAPER

Effects of Taurine on Growth and Intestinal Structure and Function of Mandarin Fish (Siniperca chuatsi)

  • CHEN Yushuang , 1 ,
  • GUO Yihua 1 ,
  • LI Bin 2 ,
  • BAI Fujin 2 ,
  • DAI Mingyun 2 ,
  • LUO Jinqiang 3 ,
  • LI Xiaojie 3 ,
  • HU Shunpei 4 ,
  • LUO Qiang 5 ,
  • LI Hongqin , 6, * ,
  • LUO Li , 1, *
Expand
  • 1 Key Laboratory of Freshwater Fish Resources and Reproductive Development, Ministry of Education, School of Fisheries, Southwest University, Chongqing 400715, China
  • 2 Chongqing Ecological Fish Industry Technology System, Chongqing Fishery Technology Extension Station, Chongqing 400400, China
  • 3 Tongnan District of Chongqing Agricultural Science and Technology Extension Center, Chongqing 402660, China
  • 4 Chongqing Zhongshui Aquaculture Co., Ltd., Chongqing 401240, China
  • 5 Bishan District Modern Agriculture Development Promotion Center, Chongqing 402760, China
  • 6 Sichuan New Hope Liuhe Science and Technology Innovation Co., Ltd., Chengdu 610000, China
*LI Hongqin, E-mail: ;
LUO Li, professor, E-mail:

Received date: 2025-09-12

  Online published: 2026-04-14

Abstract

This experiment was conducted to investigate the effects of dietary taurine content on growth performance, intestinal structure and function of mandarin fish (Siniperca chuatsi). A total of 300 mandarin fish with an initial body weight of (16.74±0.22) g were randomly allocated into 5 groups, each with 3 replicates of 20 fish. The control group (T1 group) was fed a basal diet, while the experimental groups were fed the basal diet supplemented with 2 (T2 group), 4 (T3 group), 8 (T4 group), and 16 g/kg (T5 group) taurine, respectively. The measured taurine contents in the five experimental diets were 5.35, 7.33, 9.31, 13.27, and 21.19 g/kg, respectively. The experiment lasted for 48 days. The results showed as follows: compared with T1 group, fish in the T4 group exhibited significantly higher final body weight, weight gain rate (WGR), specific growth rate (SGR), condition factor, muscle crude lipid content, and the mRNA relative expression level of the feeding-promoting gene neuropeptide Y (NPY) in the brain tissue (P<0.05), while the mRNA relative expression level of the feeding-inhibiting gene peptide YY (PYY) in the brain tissue was significantly decreased (P<0.05). Furthermore, the gut length ratio, villus length and the activities of trypsin, lipase and Na+-K+-ATPase in the intestine were significantly increased in the T4 group (P<0.05). The protein expression level of epidermal growth factor (EGF) and the mRNA relative expression levels of EGF and epidermal growth factor receptor (EGFR) genes in the intestine were also significantly upregulated (P<0.05). Concurrently, the intestinal lumen ratio, plasma diamine oxidase activity, and the contents of endotoxin and D-lactic acid were significantly reduced in this group (P<0.05). The mRNA relative expression level of the anti-inflammatory gene transforming growth factor β1 (TGF-β1) and the content of immunoglobulin M (IgM) in the intestine were significantly increased (P<0.05), whereas the mRNA relative expression levels of pro-inflammatory genes interleukin-8 (IL-8), tumor necrosis factor-α (TNF-α), and interleukin-1β (IL-1β) were significantly decreased (P<0.05). In contrast, the T5 group (21.19 g/kg taurine) showed significantly lower final body weight, WGR, and SGR compared to T1 group (P<0.05). Based on quadratic regression analysis of WGR, feed conversion ratio, and intestinal IgM content against dietary taurine levels, the optimal dietary taurine content for mandarin fish was estimated to be 11.45 to 16.65 g/kg, with an upper limit not exceeding 16.94 g/kg. In conclusion, appropriate levels of dietary taurine promote feed intake, growth, intestinal development, digestive capacity and immune function in mandarin fish, whereas excessive supplementation exerts inhibitory effects. These findings provide a scientific basis for the transition of mandarin fish aquaculture to formulated feed.

Cite this article

CHEN Yushuang , GUO Yihua , LI Bin , BAI Fujin , DAI Mingyun , LUO Jinqiang , LI Xiaojie , HU Shunpei , LUO Qiang , LI Hongqin , LUO Li . Effects of Taurine on Growth and Intestinal Structure and Function of Mandarin Fish (Siniperca chuatsi)[J]. Chinese Journal of Animal Nutrition, 2026 , 38(4) : 2904 -2916 . DOI: 10.12418/CJAN2026.233

鳜(Siniperca chuatsi)隶属鲈形目(Perciformes)、鮨科(Serranidae)、鳜属(Siniperca),是中国四大淡水名鱼之一。该物种具有较高的食用和药用价值,可补气血、益脾胃,其主要分布于中国珠江及长江流域[1]。据中国渔业统计年鉴,2023年我国鳜的养殖产量达到47.75万t,同比增长18.97%[2]。鳜作为肉食性鱼类,传统的活饵投喂、以鱼养鱼的养殖模式增加了养殖成本、患病风险。活饵鳜由于饵料系数高、投喂量大,水质易污染,易感疾病,难以防控。近年来,为积极践行农业农村部水产技术推广总站提出的“水产绿色健康养殖五大行动”之一的“配合饲料替代幼杂鱼”,本实验室对鳜营养、饲料及生态养殖技术进行了研究[3-5],然而鳜配合饲料驯化过程中极易引发肠道炎症,继发其他疾病和闭口,致使驯化成活率低,严重影响了鳜饲料养殖模式的良性发展。
牛磺酸是一种鱼类的半必需β-氨基酸,对鱼类具有广泛的生理功能,饲料中添加牛磺酸促进鱼类摄食,其对鹦鹉鱼幼鱼(Oplegnathus fasciatus)[6]与欧洲鲈(Dicentrarchus labrax)[7]的诱食作用均已得到证明。鳜在饲料驯化过程中一方面存在开口难题,需要人工添加诱食剂,同时还存在鳜肠道的生理适应性问题。大量研究表明,牛磺酸具有促进肠道生长发育、提高肠道消化与免疫功能的作用,如对尖吻鲈(Lates calcarifer)[8]、黄鳍鲷(Acanthopagrus latus)[9]与黄颡鱼(Pelteobagrus fulvidraco)[10]等鱼类的研究均已得到证明。除此外,牛磺酸还参与胆汁酸结合、细胞渗透压调节、神经元兴奋性、炎症反应和葡萄糖代谢[11]等生理过程。基于此,本试验旨在通过探讨饲料中不同含量牛磺酸对鳜生长及肠道结构和功能的影响,为鳜从传统饵料鱼养殖逐步过渡到饲料养殖提供理论依据和技术支持。

1 材料与方法

1.1 试验设计与饲料

动物试验过程严格遵守实验动物伦理规范,并经由西南大学实验动物伦理审查委员会批准,批准号:IACUC-20181015-12。选取初始体重[(16.74±0.22) g]均匀、体质健壮的鳜300尾,随机分为5个组,每个组3个重复,每个重复20尾。对照组(T1组)投喂基础饲料,试验组在基础饲料中分别添加2(T2组)、4(T3组)、8(T4组)、16 g/kg(T5组)牛磺酸(有效含量98.5%),5种试验饲料中牛磺酸实测含量分别为5.35、7.33、9.31、13.27、21.19 g/kg。试验期48 d。
综合已有鱼类(尤其是淡水肉食性鱼类)相关研究,饲料中牛磺酸的最适添加量通常为0.5%~1.6%(即5~16 g/kg)[12]。根据鳜的营养需求,配制以鱼粉、鸡肉粉和鱼油等为原料的基础饲料,在其基础上添加不同剂量的牛磺酸,用微晶纤维素进行调平配制成5种试验饲料,其组成及营养水平见表1
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
组别Groups
T1 T2 T3 T4 T5
原料Ingredients
牛磺酸Taurine 0.20 0.40 0.80 1.60
秘鲁鱼粉Peruvian fish meal 40.00 40.00 40.00 40.00 40.00
鸡肉粉Chicken powder 18.00 18.00 18.00 18.00 18.00
鱼排粉Fish steak powder1) 10.90 10.90 10.90 10.90 10.90
谷朊蛋白粉Protein powder 6.00 6.00 6.00 6.00 6.00
酶解鱼溶浆Enzymolysis hydrolysis of fish slurry 3.00 3.00 3.00 3.00 3.00
木薯淀粉Cassava starch 9.00 9.00 9.00 9.00 9.00
玉米Corn 3.70 3.70 3.70 3.70 3.70
鱼油Fish oil 2.00 2.00 2.00 2.00 2.00
大豆油Soybean oil 2.00 2.00 2.00 2.00 2.00
磷酸二氢钙Ca(H2PO4)2 2.00 2.00 2.00 2.00 2.00
胆汁酸粉Bile acid powder (30%) 0.05 0.05 0.05 0.05 0.05
预混料Premix2) 1.00 1.00 1.00 1.00 1.00
L-赖氨酸盐酸盐L-lysine hydrochloride (98.5%) 0.20 0.20 0.20 0.20 0.20
DL-蛋氨酸DL-methionine (98%) 0.10 0.10 0.10 0.10 0.10
氯化胆碱Choline chloride (50%) 0.30 0.30 0.30 0.30 0.30
防霉剂Mold inhibitor 0.10 0.10 0.10 0.10 0.10
抗氧化剂Antioxidants 0.05 0.05 0.05 0.05 0.05
微晶纤维素Microcrystalline cellulose 1.60 1.40 1.20 0.80
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels3)
水分Moisture 5.51 5.87 7.42 6.43 7.41
粗蛋白质CP 49.36 49.16 49.08 49.43 49.28
粗脂肪EE 10.01 10.08 10.14 10.31 10.34
粗灰分Ash 13.79 14.00 13.86 13.18 13.61
牛磺酸Taurine/(g/kg) 5.35 7.33 9.31 13.27 21.19

1)鱼排粉为越南巴沙鱼排粉。Fish steak powder was Vietnamese basa fish steak powder.
3)营养水平均为实测值。Nutrient levels were measured values.

2)预混料为每千克饲料提供 The premix provided the following per kg of diets:ZnSO4·7H2O 193.8 mg,MnSO4·H2O 43.1 mg,FeSO4·7H2O 696.7 mg,CuSO4·5H2O 14.3 mg,Ca(IO3)2 1.2 mg,CoCl2·6H2O 14.6 mg,Na2SeO3 0.7 mg,VA 15 mg,VD3 2 mg,VE 100 mg,VK3 5 mg,VB1 10 mg,VB2 20 mg,VB3 30 mg,VB5 35 mg,VB6 20 mg,VB11 2 mg,VB12 5 mg,生物素 biotin 2 mg,肌醇 inositol 100 mg,VC 200 mg,L-肉碱 L-carnitine 80 mg。

1.2 饲养管理

在开展试验前,先将购回的鳜于暂养池中通过基础饲料驯食15 d。试验期间,鳜饲养于西南大学水产学院室内曝气水养殖系统(直径100 cm,高60 cm,水深50 cm),采取近饱食投喂方式,每天投喂2次(09:00、17:00),记录采食情况。试验水源为曝气水,每天早、晚(10:00、18:00)各换水50%,水体溶解氧含量≥6 mg/L,氨氮含量≤0.1 mg/L,水温维持在(28±2) ℃。光照周期(L∶D)为12/12。

1.3 样品采集与制备

养殖试验结束后,饥饿处理24 h,每组每个重复中随机选取6尾鳜用3-氨基苯甲酸乙酯甲基磺酸盐(MS-222)麻醉,称重后用经肝素钠润洗的1.0 mL一次性无菌注射器从尾部静脉采血后立即放入1.5 mL离心管,以1 902×g离心10 min,将上清液分装并用液氮速冻,存放于-80 ℃冰箱,用于血浆生化指标测定。采血后将鳜置于冰上解剖,分离背部肌肉用于肌肉常规营养成分测定,取内脏团和肝脏并称重,取1.0 cm3胃和肠道组织样本用于酶活性和表皮生长因子(EGF)蛋白表达量测定;T1、T4、T5组每个重复中随机选取3尾鳜,在无菌条件下取0.5 cm肠道和约0.2 cm3脑组织于无RNA酶离心管中,用于炎症、发育及摄食相关基因的mRNA相对表达量的测定,以上样品采集后均经液氮速冻后存放于-80 ℃冰箱待测。取T1、T4、T5组1 cm中肠组织样本,使用4%多聚甲醛溶液进行固定,用于制作组织切片。

1.4 指标测定

1.4.1 饲料和肌肉常规营养成分

饲料中牛磺酸的含量参考农业部2483号公告—5—2016《饲料中牛磺酸的测定 高效液相色谱法》测定;饲料和肌肉中水分含量采用105 ℃恒温干燥法(GB/T 6435—2014)测定,粗蛋白质(CP)含量采用凯氏定氮法(GB/T 6432—2018)测定,粗脂肪(EE)含量采用索氏抽提法(GB/T 6433—2025)测定,粗灰分(Ash)含量采用550 ℃灼烧法(GB/T 6438—2007)测定。

1.4.2 生长性能和形体指标

生长性能和形体指标相关计算公式如下:
增重率(WGR,%)=[(终末均重-初始均重)/初始均重]×100;
特定生长率(SGR,%/d)={[ln(终末均重)-ln(初始均重)]/试验天数}×100;
饲料系数(FCR)=饲料消耗量/(终末均重-初始均重);
存活率(SR,%)=(终末尾数/初始尾数)×100;
脏体比(VSI,%)=(内脏团重/鱼体重)×100;
肝体比(HSI,%)=(肝脏重/鱼体重)×100;
肠长比(GLR,%)=(肠道长/鱼体长)×100;
肥满度(CF,g/cm3)=(鱼体重量/鱼体长3)×100。

1.4.3 消化吸收与肠道免疫屏障功能生化指标

胃组织中胃蛋白酶(pepsin)和氢-钾ATP酶(H+-K+-ATPase)活性及肠道的胰蛋白酶(trypsin)、脂肪酶(lipase)、淀粉酶(amylase)和钠-钾ATP酶(Na+-K+-ATPase)活性通过南京建成生物工程研究所试剂盒说明书进行测定。肠道中免疫球蛋白M(immunoglobulin M,IgM)含量由厦门慧嘉生物科技有限公司生产的酶联免疫吸附试验(ELISA)试剂盒测定。肠道中EGF含量以及血浆中内毒素(endotoxin,ET)、D-乳酸(D-lactic acid,D-LA)含量与二胺氧化酶(diamine oxidase,DAO)活性均采用双抗体夹心ELISA法,通过上海优选生物科技有限公司的ELISA试剂盒测定。需要说明的是,本次试验仅对T1组和生长性能结果最好的T4组进行血浆中DAO活性与ET、D-LA含量测定。

1.4.4 肠道组织结构与形态学指标

肠道组织的苏木精-伊红(H&E)染色切片由武汉赛维尔生物科技有限公司完成,采用ImageJ软件对组织切片图像进行形态计量学分析。随机选择10根结构完整的肠绒毛,测量其长度(测量范围为隐窝基部至绒毛顶端);在肠壁多个方位对肌层厚度进行10次测量;肠道空腔率通过分别勾勒肠腔与肠道总横截面积计算,定义为肠腔面积占肠道总横截面积(包括肠壁和肠腔)的百分比。

1.4.5 肠道和脑组织总RNA的提取与cDNA合成

取0.5 g液氮速冻后的T1、T4和T5组的肠道和脑组织样品,参照说明书,总RNA使用RNAiso Plus试剂(TaKaRa,日本)提取,使用NanoDrop2000超微量分光光度计(Thermo Fisher,美国)测定总RNA浓度。并通过在1.2%琼脂糖凝胶电泳检测RNA完整性。取1 μg总RNA为模板,按照PremixScriptTM RT Master Mix反转录试剂盒(TaKaRa公司)说明书将RNA反转录cDNA,于-20 ℃保存备用。
实时荧光定量PCR(qRT-PCR):根据本实验室鳜肠道转录组测序(RNA Seq)结果,筛选出抗炎基因转化生长因子-β1(TGF-β1),促炎基因白细胞介素-8(IL-8)、白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α),发育相关基因EGF、表皮生长因子受体(EGFR),以β-肌动蛋白(β-actin)为内参基因;根据本实验室鳜脑组织转录组的测序结果,筛选出促摄食基因神经肽Y(neuropeptide Y,NPY),抑食基因酪酪肽(peptide tyrosine tyrosine,PYY),以核糖体蛋白L13A(RPL13A)为内参基因。运用Primer Primier 6.0软件设计特异性引物序列,具体见表2,并送至生工生物工程(上海)股份有限公司合成。使用ABI-7500型荧光定量PCR仪(Applied Biosystems,ABI,美国)进行qRT-PCR检测。通过梯度稀释法构建标准曲线,获得相应的标准方程及相关系数。反应体系总体积为20 μL,其中包含cDNA模板2 μL,SYBR Premix Ex TaqTM(TaKaRa)10 μL,上、下游引物各0.5 μL,ddH2O 7 μL。qRT-PCR反应程序为:95 ℃预变性60 s;95 ℃变性5 s,60 ℃退火30 s,共40个循环;最后0 ℃反应60 s。肠道组织目的基因以β-actin作为内参基因,脑组织目的基因以RPL13A作为内参基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因名称
Gene names
引物序列
Primer sequence (5'—3')
退火温度
Annealing
temperature/℃
产物长度
Product
length/bp
β-肌动蛋白
β-actin
F:GGAGAAGCTGTGGTACGTCGC
R:TCTGGGCAACGGAACCTCTCA
60 137
转化生长因子-β1
TGF-β1
F:CACAGAACAGGAGGAGGAGGAGTA
R:CACTGGTCAGCAGGCGGTAATC
60 164
白细胞介素-8
IL-8
F:CATCACCTCTATTGTGGTGCTCC
R:CCTATGGGTTTGCTCTCTGTCTG
60 117
白细胞介素-1β
IL-1β
F:TTCAGTTCAGGAGGACGGATG
R:TGTGGCAAGACAGGTAGAGATT
60 231
肿瘤坏死因子-α
TNF-α
F:GCATACACAACCGCACTA
R:CTTCCATTCCAGCACCAA
60 170
表皮生长因子
EGF
F:TGCTCTCCATCGCTGCCTGT
R:TCATCTGTCACGCTGGTCTCACT
60 103
表皮生长因子受体
EGFR
F:TTACTGGATACTTGTGGATTG
R:GTAGTGGATATTGAGCTGAGC
60 137
核糖体蛋白L13A
RPL13A
F:TATCCCCCCACCCTATGACA
R:ACGCCCAAGGAGAGCGAACT
60 117
神经肽Y
NPY
F:CCCTGACGGAAGGATACCCG
R:CTGTGGAATCGTGTCTGTGCT
60 203
酪酪肽
PYY
F:CCCAAAACCTGAAAACCC
R:TGCTGTCGCCACCAAA
60 103

1.5 数据处理与统计

试验数据采用SPSS 22.0软件进行统计分析。首先,利用Shapiro-Wilk检验对数据进行正态性检验,并通过Levene检验进行方差齐性分析。若数据满足方差齐性,采用单因素方差分析进行组间差异比较;若方差不齐,则采用Welch校正方差分析。当方差分析结果差异显著时,进一步进行多重比较:方差齐性数据采用Duncan氏法,方差不齐数据则采用Games-Howell法。P<0.05作为差异显著性判断标准。数据用平均值±标准差(mean±SD)表示。

2 结果

2.1 牛磺酸对鳜生长性能、形体指标及肌肉常规营养成分的影响

表3可知,各组间初始均重和存活率差异不显著(P>0.05)。与T1组相比,T4组的终末均重和增重率分别显著增加了13.00%与18.38%(P<0.05),T5组终末均重、增重率和特定生长率显著降低(P<0.05)。
表3 牛磺酸对鳜生长性能的影响

Table 3 Effects of taurine on growth performance of mandarin fish

项目
Items
组别Groups
T1 T2 T3 T4 T5
初始均重IBW/g 16.74±0.22 16.74±0.24 16.73±0.24 16.74±0.28 16.73±0.28
终末均重FBW/g 52.55±0.28bc 53.61±0.98c 56.90±1.62ab 59.38±3.01a 40.00±4.18d
尾均摄食量FI/g 31.73±0.55b 31.61±0.96b 32.86±0.21b 35.06±0.31a 20.38±0.69c
增重率WGR/% 214.68±1.24b 220.57±6.73b 239.70±1.40a 254.13±13.76a 137.37±6.59c
饲料系数FCR 0.89±0.02b 0.88±0.02b 0.82±0.04b 0.83±0.06b 1.01±0.02a
特定生长率SGR/(%/d) 3.03±0.08b 3.15±0.06b 3.49±0.13a 3.61±0.23a 2.46±0.25c
存活率SR/% 100.00 100.00 100.00 100.00 100.00

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

表4可知,肥满度在T4组达到最高,且显著高于T1组(P<0.05);各组间脏体比、肝体比无显著差异(P>0.05);与T1组相比,试验组肠长比均显著提高(P<0.05)。随着饲料中牛磺酸添加量增加,肌肉EE含量呈先升后降的趋势,T4组肌肉EE含量显著高于T1组(P<0.05)且达到最大值;各组间肌肉水分、CP、Ash含量无显著差异(P>0.05)。
表4 牛磺酸对鳜形体指标及肌肉常规营养成分的影响

Table 4 Effects of taurine on physical indicators and muscle regular nutrient composition of mandarin fish

项目
Items
组别Groups
T1 T2 T3 T4 T5
形体指标Physical indicators
肥满度CF/(g/cm3) 2.07±0.12b 2.09±0.11ab 2.11±0.06ab 2.18±0.10a 2.17±0.10a
脏体比VSI/% 8.37±0.99 8.05±0.59 8.02±0.79 7.99±0.90 8.13±0.88
肝体比HSI/% 2.05±0.24 1.98±0.39 1.89±0.18 1.87±0.29 2.01±0.26
肠长比GLR/% 30.22±6.04b 33.11±4.38a 33.57±5.06a 35.20±5.15a 32.51±6.75a
常规营养成分Regular nutrient composition/%
水分Moisture 79.12±0.18 79.15±0.33 79.04±0.38 78.96±0.30 79.20±0.13
粗蛋白质CP 18.73±0.05 18.41±0.28 18.96±0.04 18.53±0.29 18.24±0.25
粗脂肪EE 0.79±0.07b 0.85±0.02ab 0.87±0.03a 0.88±0.01a 0.66±0.02c
粗灰分Ash 1.11±0.00 1.15±0.04 1.16±0.02 1.12±0.04 1.11±0.06

肠道长度在未拉伸的情况下测量。

Intestinal length was measured without stretching.

2.2 牛磺酸对鳜消化吸收与肠道免疫屏障功能生化指标的影响

表5可知,各组间鳜胃组织中胃蛋白酶和氢-钾ATP酶活性均无显著差异(P>0.05)。随着饲料中牛磺酸添加量增加,鳜肠道中胰蛋白酶、脂肪酶和钠-钾ATP酶活性及IgM含量均呈先升后降趋势,且在T4组达到最高,较T1组分别显著提高了16.67%、76.97%、32.25%和39.87%(P<0.05);随着饲料中牛磺酸添加量增加,鳜肠道中淀粉酶活性与EGF蛋白表达量均呈上升趋势,在T5组达到最大值,且显著高于T1组(P<0.05)。与T1组相比,T4组血浆中DAO活性与ET、D-LA含量分别显著降低了39.91%、38.29%和22.66%(P<0.05)。
表5 牛磺酸对鳜消化吸收与肠道免疫屏障功能生化指标的影响

Table 5 Effects of biochemical indicators of digestive absorption and intestinal immune and barrier function of mandarin fish

项目
Items
组别Groups
T1 T2 T3 T4 T5
胃Stomach
胃蛋白酶
Pepsin/(U/mg prot)
21.14±0.84 21.59±0.09 21.48±0.17 21.46±0.33 21.11±0.10
氢-钾ATP酶
H+-K+-ATPase/
(U/mg prot)
7.41±0.12 7.35±0.23 7.23±0.13 7.32±0.14 7.04±0.51
肠道Intestine
胰蛋白酶
Trypsin/(U/mg prot)
1 527.02±71.37b 1 620.74±143.09ab 1 659.25±67.60ab 1 781.53±106.64a 1 522.47±284.80c
脂肪酶
Lipase/(U/mg prot)
19.58±0.41d 27.97±0.56cd 30.21±0.27b 34.65±0.26a 26.65±0.34c
淀粉酶
Amylase/(U/mg prot)
0.53±0.02b 0.53±0.03b 0.54±0.01b 0.55±0.01b 0.63±0.01a
钠-钾ATP酶
Na+-K+-ATPase/
(U/mg prot)
2.79±0.06c 3.19±0.12b 3.25±0.11b 3.69±0.09a 3.20±0.05b
表皮生长因子
EGF/(pg/mL)
187.94±10.00c 203.06±18.04c 238.36±7.87b 266.72±12.30a 267.98±20.22a
免疫球蛋白M
IgM/(μg/mL)
3.06±0.02e 3.55±0.03d 3.90±0.03c 4.28±0.00a 4.20±0.04b
血浆Plasma
二胺氧化酶
DAO/(U/mL)
21.8±0.5a 13.1±0.6b
内毒素
ET/(EU/L)
610.3±16.5a 376.6±4.1b
D-乳酸
D-LA/(μmol/L)
241.4±1.7a 186.7±2.5b

2.3 牛磺酸对鳜肠道结构的影响

表6可知,随着饲料中牛磺酸添加量增加,鳜肠道肌层厚度、绒毛数和绒毛长度均呈现先升后降的趋势,在T4组达到最高。与T1组相比,T4组绒毛长度显著提高了18.42%(P<0.05),空腔率显著降低了33.94%(P<0.05)。如图1所示,通过肠道组织切片观察发现,试验组鳜肠道肠壁厚度、绒毛高度和隐窝深度较T1组均有所增加。
表6 牛磺酸对鳜肠道组织结构的影响

Table 6 Effects of taurine on intestinal tissue structure of mandarin fish

项目
Items
组别Groups
T1 T2 T3 T4 T5
肌层厚度Muscle thickness/μm 124.28±14.94 127.75±14.27 131.65±24.23 150.71±25.71 126.25±26.16
绒毛数Villus number/根 32.50±0.71 32.75±2.50 35.00±2.16 36.16±3.00 33.00±2.00
绒毛长度Villus length/μm 661.00±61.95b 664.44±57.87b 757.26±59.64a 782.78±51.64a 653.90±43.02b
空腔率Cavity rate/% 41.10±4.72a 41.81±3.28a 37.57±9.17ab 27.15±6.65b 33.48±7.48ab
图1 鳜肠道组织切片H&E染色图

T1:T1组 T1 group;T4:T4组 T4 group;T5:T5组 T5 group。下图同。The same as below.

Fig.1 H&E stained section of mandarin fish intestine tissue

2.4 牛磺酸对鳜肠道炎症、发育相关基因及脑组织食欲相关基因表达的影响

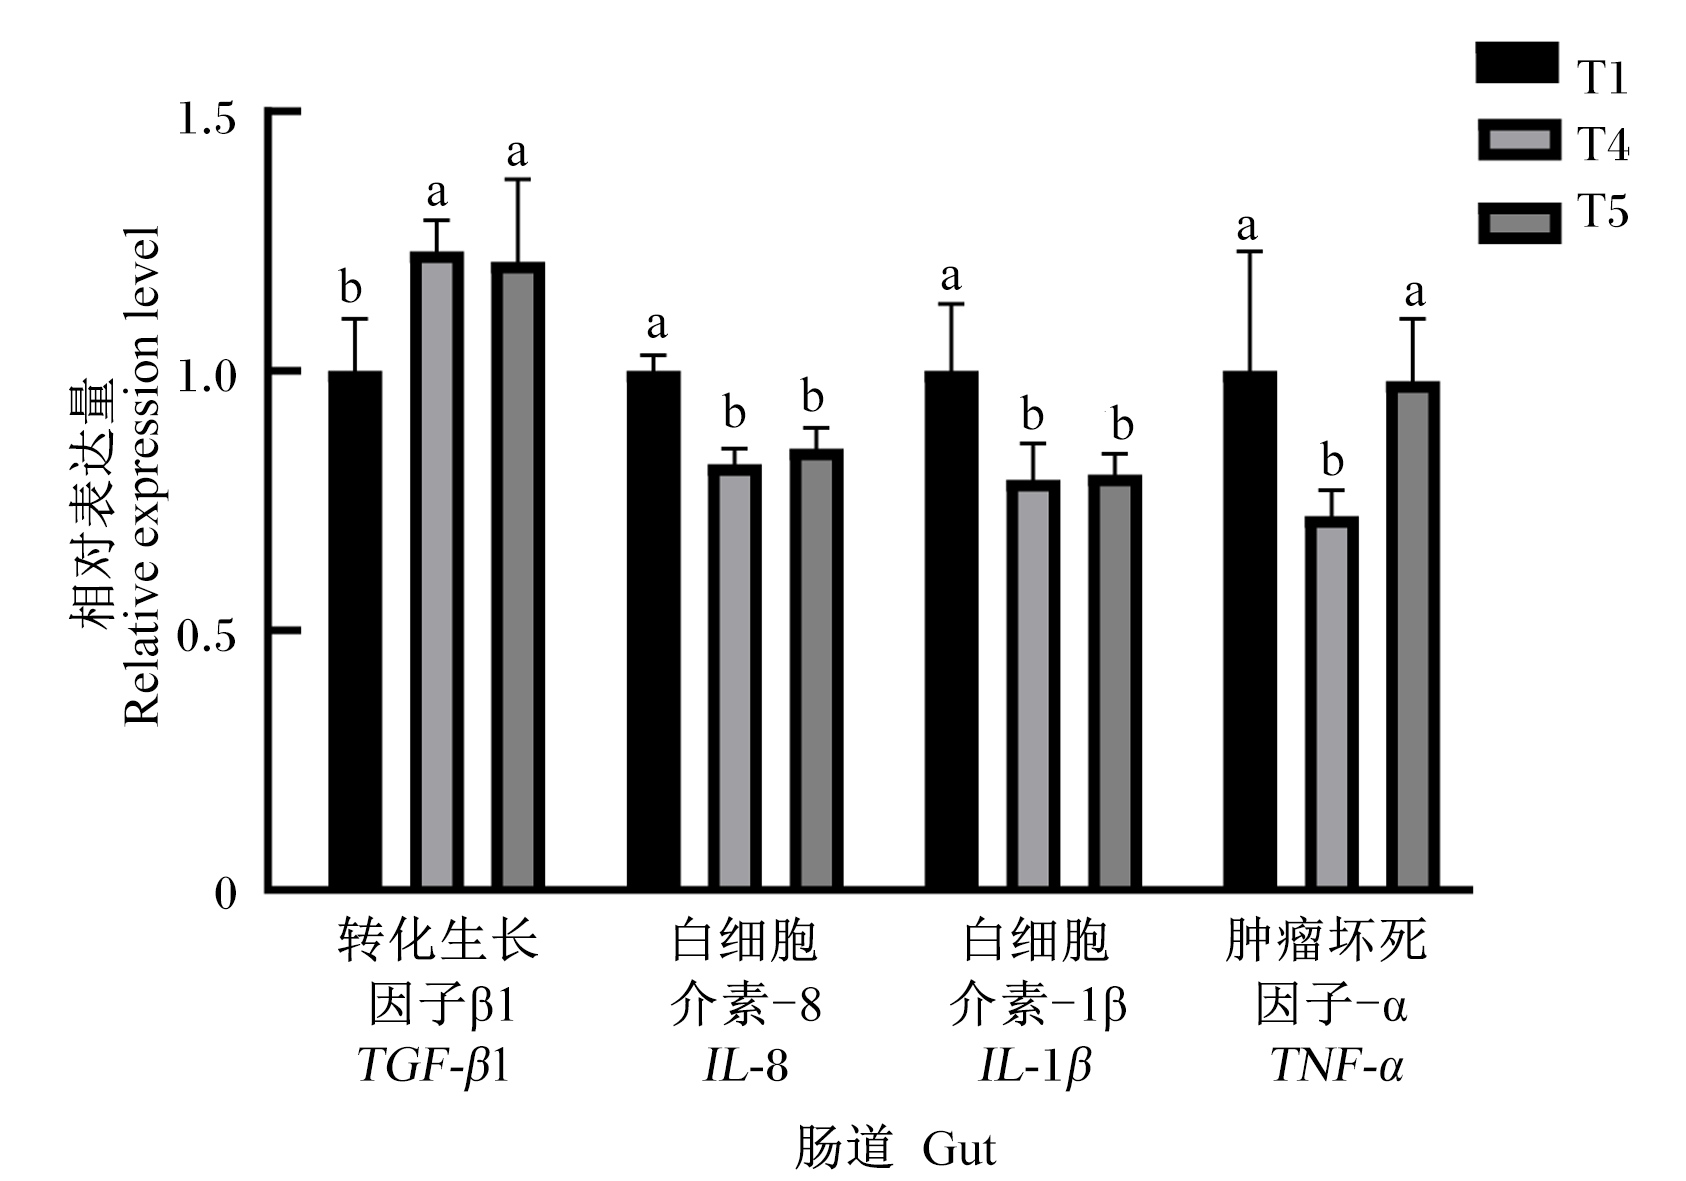
图2所示,与T1组相比,T4、T5组肠道抗炎基因TGF-β1的mRNA相对表达量显著上调(P<0.05),T4、T5组肠道促炎基因IL-8和IL-1β的mRNA相对表达量均显著下调(P<0.05),T4组肠道促炎基因TNF-α的mRNA相对表达量显著下调(P<0.05)。
图2 牛磺酸对鳜肠道炎症相关基因表达的影响

数据柱形标注相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of taurine on gene expression related to intestinal inflammation of mandarin fish

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

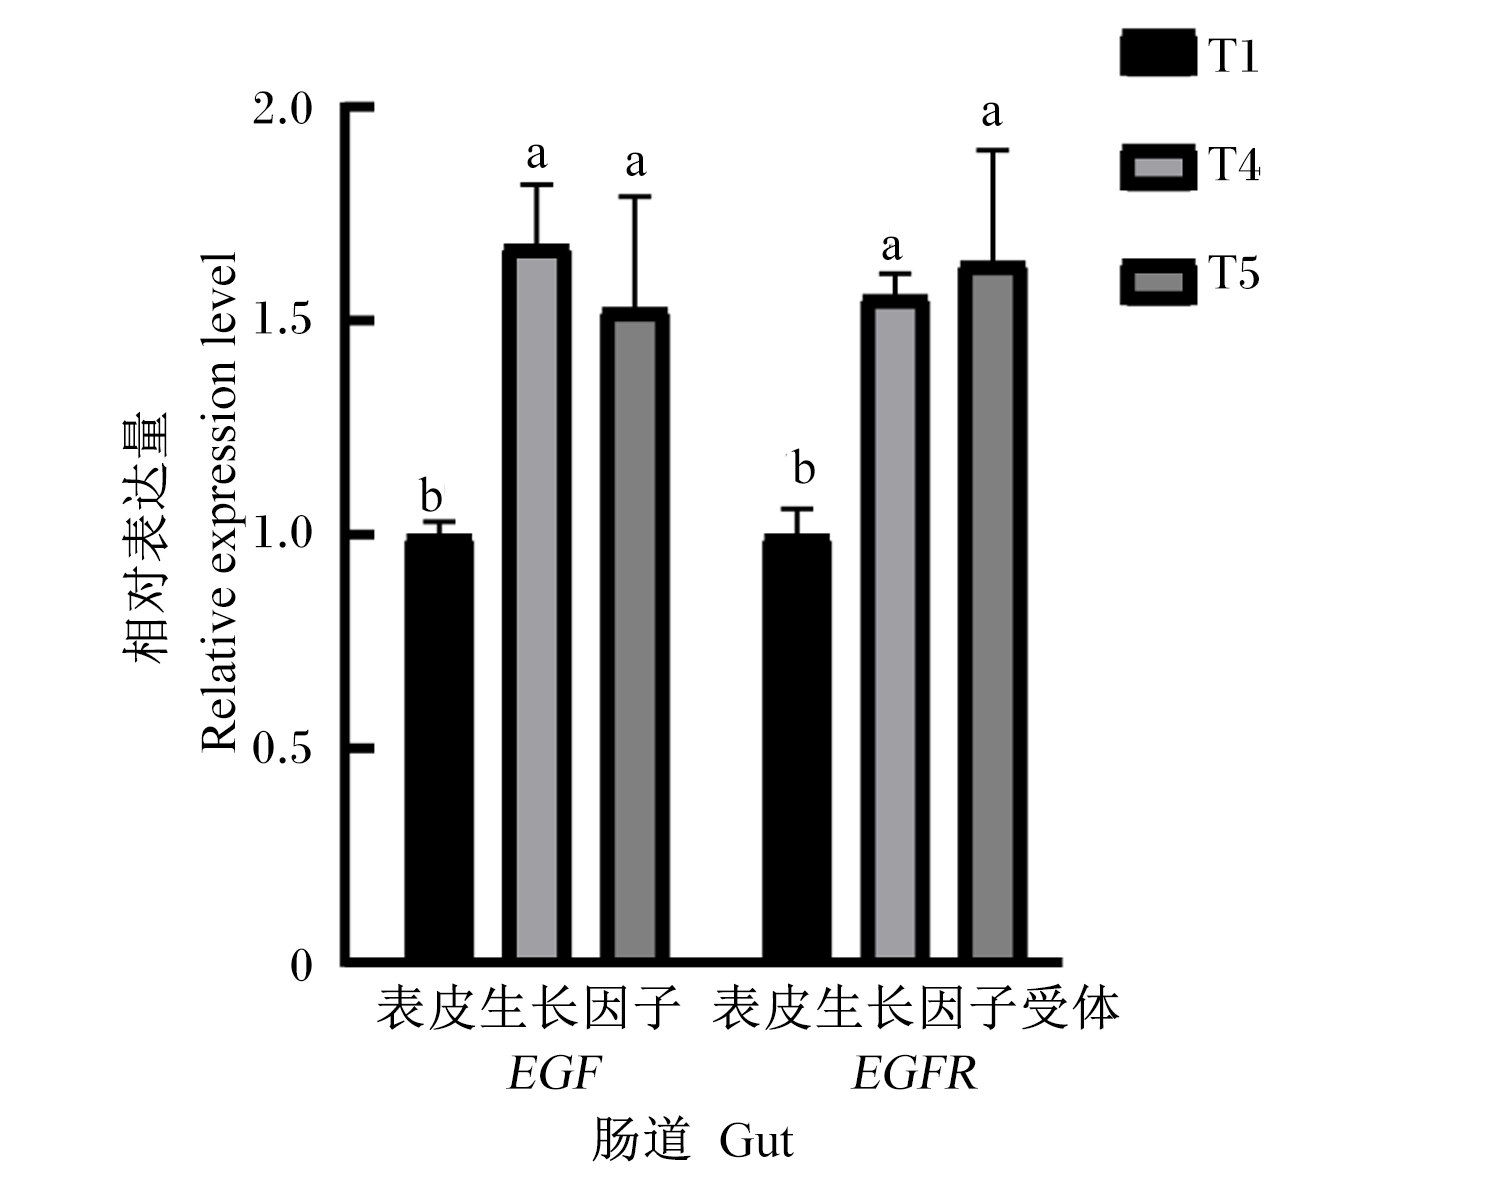
图3所示,与T1组相比,T4、T5组的肠道发育相关基因EGFEGFR的mRNA相对表达量均显著上调(P<0.05)。
图3 牛磺酸对鳜肠道发育相关基因表达的影响

Fig.3 Effects of taurine on gene expression related to intestinal development of mandarin fish

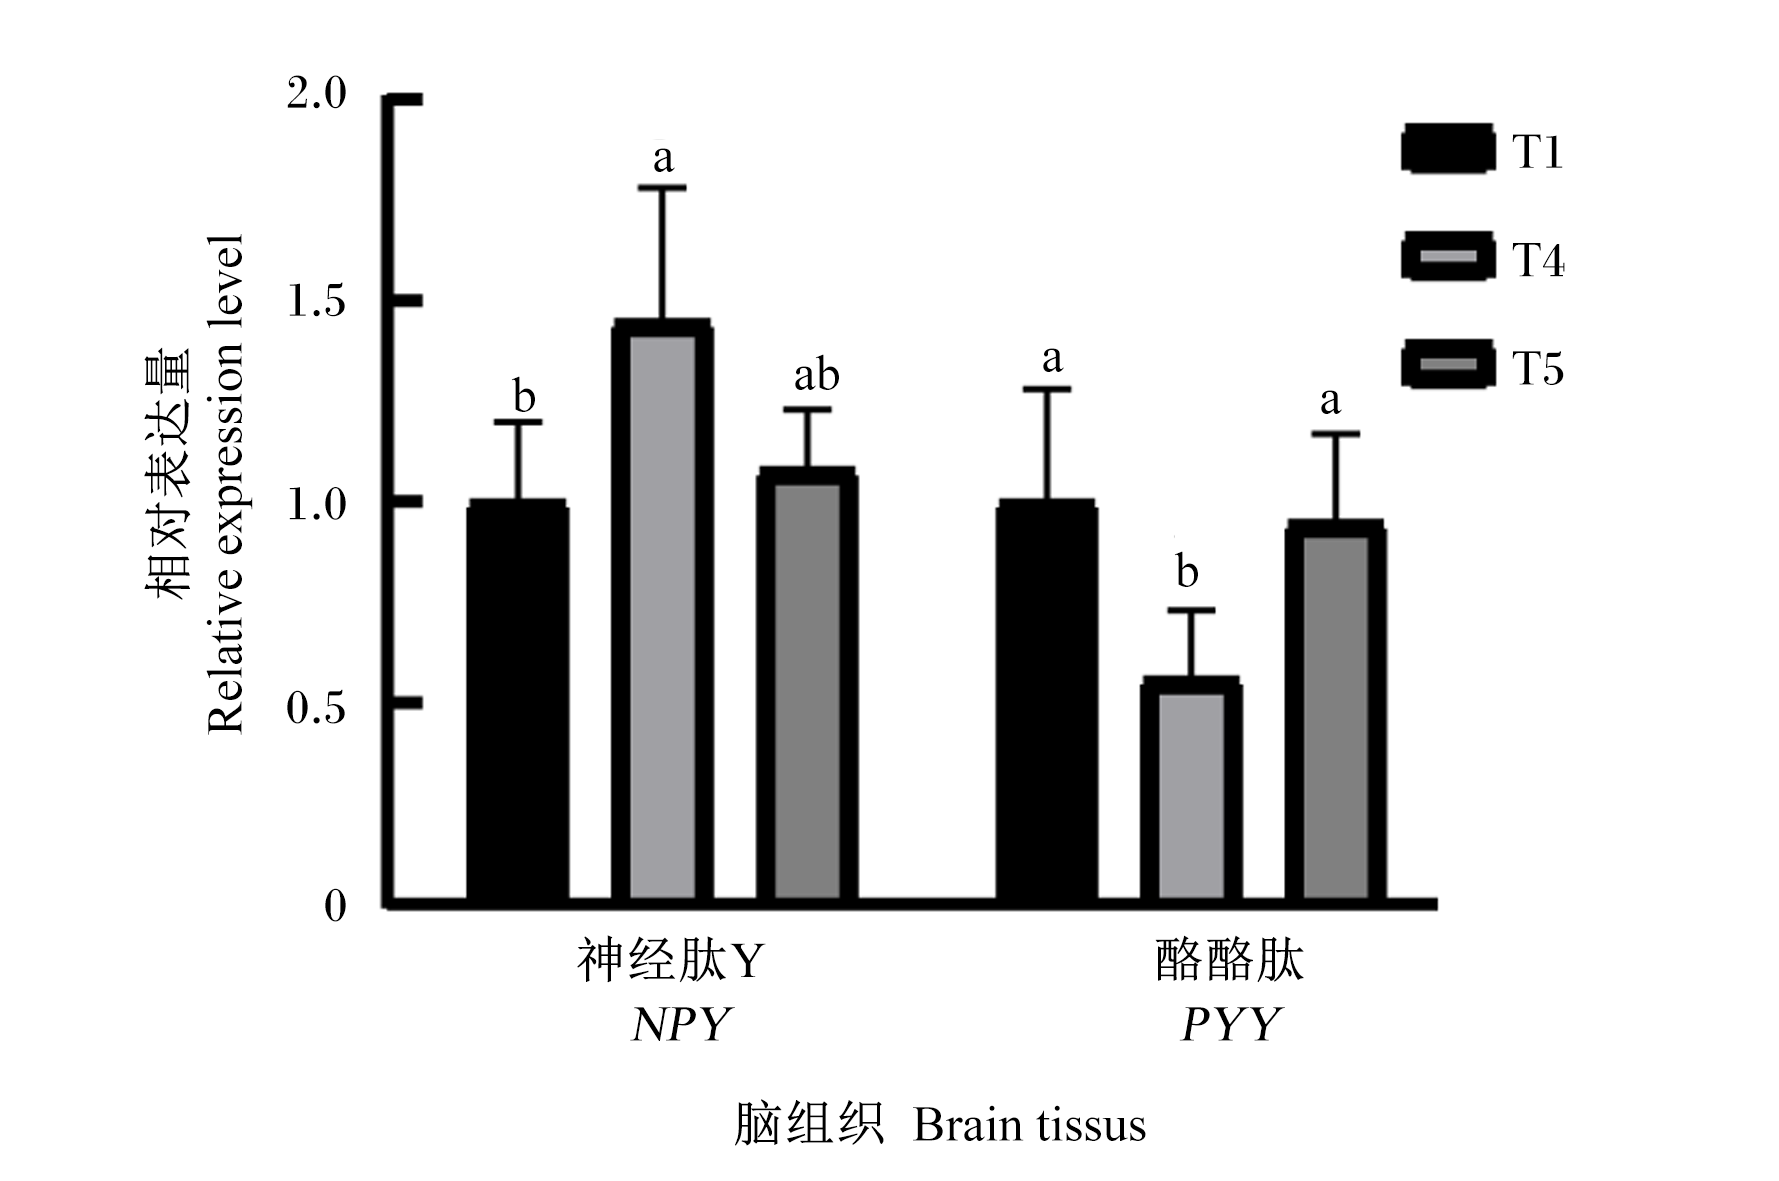
图4所示,与T1组相比,T4组脑组织促摄食基因NPY的mRNA相对表达量显著上调(P<0.05),抑食基因PYY的mRNA相对表达量显著下调(P<0.05)。
图4 牛磺酸对鳜脑组织食欲相关基因表达的影响

Fig.4 Effects of taurine on expression of appetite-related genes in brain tissue of mandarin fish

2.5 基于关键指标回归分析与牛磺酸最适含量

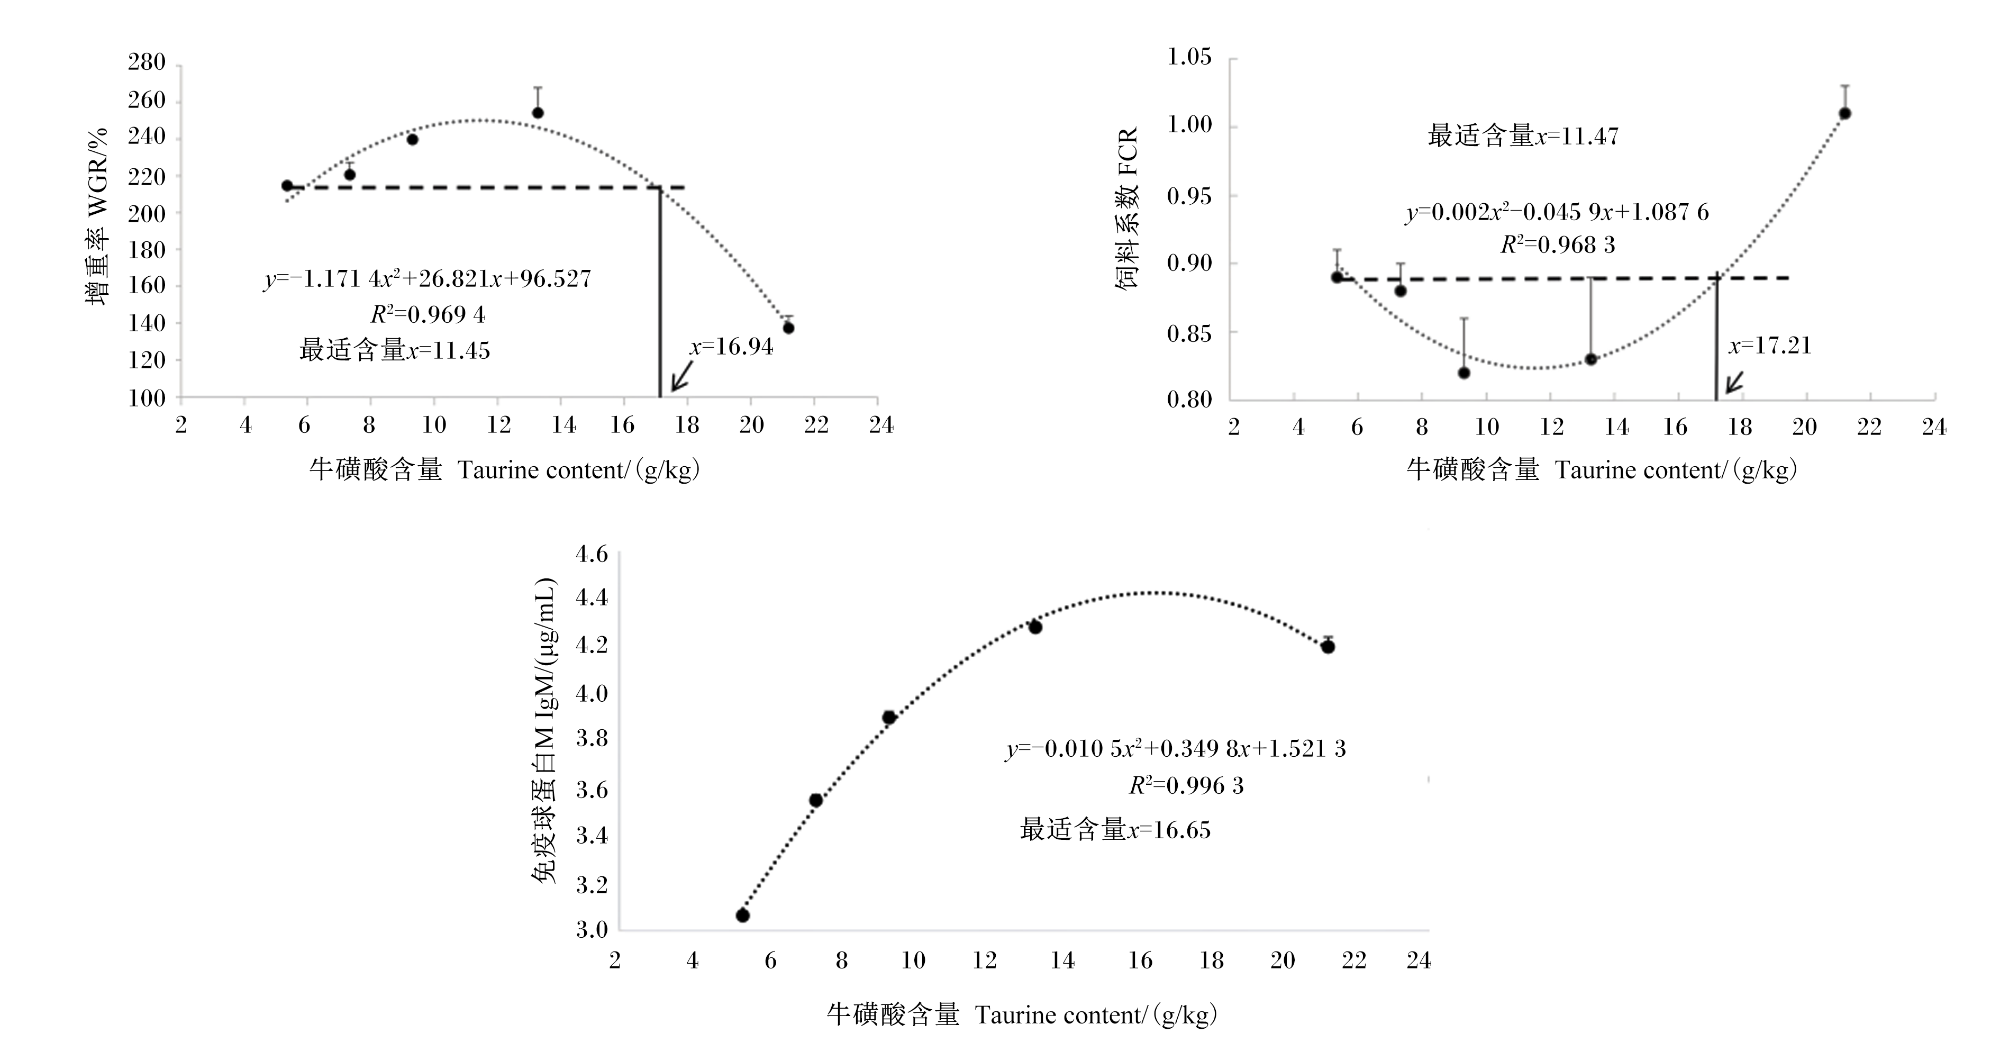
以饲料中牛磺酸实测含量为自变量,以增重率、饲料系数及肠道IgM含量为因变量进行二次回归分析得出,鳜饲料中牛磺酸适宜含量为11.45~16.65 g/kg,不宜高于16.94 g/kg(图5)。
图5 饲料中牛磺酸含量(实测)与鳜增重率、饲料系数、肠道IgM含量的关系

Fig.5 Relationship between feed taurine content (measured) and weight gain rate, feed coefficient and intestinal IgM content of mandarin fish

3 讨论

3.1 牛磺酸提高鳜生长性能

本试验结果表明,牛磺酸可显著提高鳜生长性能。牛磺酸作为一种含硫氨基酸,可以电离成胺基和磺酸基,鱼类的嗅觉感觉细胞对离子化氨基酸特别敏感[13]。研究发现,牛磺酸能够显著影响大黄鱼嗅觉受体基因表达[14],显著增强鱼类对饲料的感知和摄食行为,本试验中,鳜的尾均摄食量随饲料中牛磺酸添加量增加而不断提高的结果也支持这一结论,表明牛磺酸是一种有效的诱食剂。其诱食效果在尼罗罗非鱼(Oreochromis niloticus)[15]与黄鳝(Monopterus albus)[16]上也得到证实。
NPY是一种中枢性促摄食神经递质,在已有研究中[17]被证实能够有效刺激鱼类摄食,从而直接或间接促进生长。而PYY则通过介导下丘脑弓状核及丝裂原活化蛋白激酶(MAPK)信号通路作用于食欲中枢,增加机体饱腹感[18],从而抑制摄食。本试验中,与T1组相比,当饲料中牛磺酸含量为13.27 g/kg(T4组)时,鳜脑组织NPY的mRNA相对表达量显著上调,同时PYY的mRNA相对表达量显著下调。这表明,牛磺酸可能通过同时上调NPY和下调PYY的表达,双重调控摄食中枢的信号平衡。这种对食欲调控网络的协同作用,从分子层面解释了牛磺酸对鳜具有显著诱食效果的作用机制。
本试验进一步揭示了牛磺酸的效应具有显著的物种特异性。相较于黄颡鱼等对人工饲料接受度较高的杂食性鱼类,鳜作为典型肉食性鱼类,其诱食剂的研发更具挑战。已有的物种对比研究表明,牛磺酸的最适添加量因鱼而异[12]。例如,对于大菱鲆(Scophthalmus maximus),研究表明其半精制饲料中最适添加量为0.5%~1.0%(即5~10 g/kg),且能有效促进摄食和生长[19];在植物蛋白质饲料中补充牛磺酸也能缓解其生长抑制[20]。相比之下,本试验发现鳜获得最佳生长性能的T4组,牛磺酸含量为13.27 g/kg(约1.33%),且首次在鳜鱼上从摄食相关基因(NPYPYY)协同表达角度阐明其诱食机制。这凸显了针对特定养殖品种开展精准营养研究的必要性。

3.2 牛磺酸通过促进鳜肠道发育提高消化吸收功能

牛磺酸能够改善鱼类肠道形态结构,有助于扩大吸收面积[21],从而提高消化吸收效率。本试验中,饲料中添加牛磺酸血浆中DAO活性与ET、D-LA含量显著下降,表明牛磺酸能够显著改善鳜肠道屏障功能,减少肠道通透性,防止有害物质进入血液循环。同时,本试验中,与T1组相比,T4组肠道绒毛长度显著提高,空腔率显著降低,这有助于增加肠道的吸收面积,提高营养物质的吸收效率。本试验中,与T1组相比,T4、T5组的肠道发育相关基因EGFEGFR的mRNA相对表达量均显著上调,进一步说明牛磺酸可促进肠道发育,这与Wen等[22]研究结果一致。EGF信号传导是细胞生物学中的一个关键过程,涉及到细胞增殖、分化和存活。EGF与EGFR可共同形成表皮生长因子受体二聚体,介导EGFR磷酸化与蛋白激酶亚单位的聚集,引起Ras蛋白激活,促进细胞增殖[23],从而增强肠道的修复和再生能力。
牛磺酸还能提高肠道内多种消化酶的活性。它可以与胆汁酸结合形成消化道中脂类消化吸收所必需的牛磺胆酸,增加各种脂肪酶的活性,降低脂肪的表面张力,促进脂肪水解的进行[24]。本试验中,各组间鳜胃组织中胃蛋白酶和氢-钾ATP酶活性均无显著差异,可见牛磺酸对鳜胃消化能力无显著影响;而肠道中胰蛋白酶、脂肪酶和钠-钾ATP酶活性随着饲料中牛磺酸添加量增加显著提高。钠-钾ATP酶是维持细胞膜电位和驱动多种营养物质主动转运的关键酶[25]。牛磺酸通过提高钠-钾ATP酶的活性,可进一步增强了肠道上皮细胞的吸收能力。综上所述,牛磺酸可显著改善鳜肠道消化吸收功能,但其对鳜胃消化能力的影响仍需进一步探讨。
牛磺酸改善肠道健康的功能在不同鱼类中均有报道,但其作用的侧重点和机制可能有所不同。例如,在大菱鲆的研究中,在豆粕替代鱼粉的饲料中添加1%牛磺酸,可显著改善其肠皱襞高度和绒毛高度[26]。本试验不仅证实了牛磺酸对鳜肠道形态和屏障功能的全面改善,还通过上调EGFEGFR表达,从促进细胞增殖的信号通路层面揭示了其促进肠道发育的潜在分子机制。

3.3 牛磺酸调节鳜肠道免疫功能

已有研究表明,牛磺酸对鱼类免疫功能的调节作用可能涉及多个通路机制。Yan等[27]等发现,牛磺酸可显著提高草鱼幼鱼(Ctenopharyngodon idella)肠道的IgM含量,牛磺酸过量添加其含量仍高于对照组,与本试验结果一致。此外,体外试验证据显示,牛磺酸可通过抑制核因子-κB(nuclear factor kappa B,NF-κB)信号通路活化来调节促炎因子的生物活性[28],提示该通路可能参与介导牛磺酸对IgM表达的调控作用。本试验中观察到试验组抗炎基因TGF-β1的mRNA相对表达量显著上调,同时促炎基因IL-8、IL-1βTNF-α等的mRNA相对表达量显著下调,这与黄鳝(Monopterus albus)肠道组织[29]、大弹涂鱼(Boleophthalmus pectinirostris)肝脏[30]的炎症调控研究结果相吻合,进一步支持牛磺酸在硬骨鱼类中具有保守的抗炎作用结论。
从分子作用机理层面分析,牛磺酸作为已被证实的次氯酸(HOCl)中和剂,其与中性粒细胞氧化剂反应生成的牛磺酸氯胺(TauCl)已被证实可干扰NF-κB信号传导[31]。基于鱼类与哺乳动物在先天免疫应答中的保守性特征,饲料中添加的外源性牛磺酸可能与鱼体内源性HOCl/次溴酸(HOBr)发生反应[32-33],促进TauCl/牛磺酸溴胺(TauBr)等生物活性物质的局部形成。这一作用机制在人类慢性鼻窦炎、炎症性肠病等中性粒细胞浸润相关炎症模型中已获得试验证据支持[33],其在水生动物炎症调控中可能具有相似的分子路径,具体有待进一步研究。
综上所述,牛磺酸主要通过刺激摄食、改善肠道结构与功能、调节肠道免疫这3个方面的协同效应提高鳜生长性能,表现为特定生长率的提高和饲料系数的降低。

3.4 牛磺酸对鳜生长的抑制作用

本试验中,当饲料中牛磺酸含量提高至21.19 g/kg(T5组)时,鳜生长性能显著下降,这与花鲈(Lateolabrax maculatus)[34]和大菱鲆(Scophthalmus maximus L.)[35]上研究结果相似。生长受阻直接表现为高剂量组鳜的尾均摄食量显著减少,其背后的分子机制可能与食欲中枢调控失衡有关:该组鳜脑组织中NPYPYY的mRNA的mRNA相对表达量均从最适剂量组的峰值回落,二者共同印证了高剂量牛磺酸干扰了精细的摄食调控稳态。
从代谢层面分析,饲料中高剂量牛磺酸引发了营养物质利用的紊乱。一方面,肠道中脂肪酶活性升高但鱼肌肉中EE含量反而显著降低,表明脂肪消化与沉积过程脱节,大量水解产生的游离脂肪酸可能未被有效利用,转而增加了肝脏的代谢负荷与氧化应激风险[24];另一方面,作为肉食性鱼类生长的核心限制因素,蛋白质的消化吸收受到直接制约,肠道中胰蛋白酶活性的显著下降直接限制了蛋白质的水解效率与氨基酸的供应[36]

4 结论

综上所述,饲料中适量(11.45~16.65 g/kg)牛磺酸具有促进鳜摄食、生长和肠道发育,提高消化吸收能力,增强肠道屏障及免疫功能的作用,而含量高于16.94 g/kg起负面效应。实际生产中建议将饲料中牛磺酸含量控制在11.50 g/kg以最大化生长性能,节约成本。
[1]
SUN L F, LI J, LIANG X F, et al. Microsatellite DNA markers and their correlation with growth traits in mandarin fish (Siniperca chuatsi)[J]. Genetics and Molecular Research, 2015, 14(4):19128-19135.

DOI PMID

[2]
中华人民共和国农业农村部渔业渔政管理局,全国水产技术推广总站,中国水产学会. 2024中国渔业统计年鉴[M]. 北京: 中国农业出版社, 2024:25.

Bureau of Fisheries and Fishery Administration,Ministry of Agriculture and Rural Affairs of the People’s Republic of China,National Fisheries Technology Extension Center,China Society of Fisheries. China fishery statistical yearbook 2024[M]. Beijing: China Agriculture Press, 2024:25. (in Chinese)

[3]
徐杭忠, 张皓迪, 王贵龙, 等. 冬季低水温鳜短期饥饿和摄食的生理状态比较[J]. 水产学报, 2022, 46(9):1572-1581.

XU H Z, ZHANG H D, WANG G L, et al. Comparison of physiological status of short-term starvation and feeding of mandarin fish (Siniperca chuatsi) at low temperature in winter[J]. Journal of Fisheries of China, 2022, 46(9):1572-1581. (in Chinese)

[4]
侯静宜, 许耀升, 方揽月, 等. 左旋肉碱对鳜生长、抗氧化能力及肠道和肝脏功能的改善作用研究[J]. 动物营养学报, 2024, 36(3):1834-1845.

DOI

HOU J Y, XU Y S, FANG L Y, et al. Research on improvement of growth,antioxidant ability,intestinal and hepatic function of Siniperca chuatsi by L-carnitine[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1834-1845. (in Chinese)

[5]
于俊琦, 卢桦, 陈琪琪, 等. 越冬期鳜生长、消化代谢、抗氧化及免疫能力的动态变化[J]. 水产学报, 2025, 49(5):059610.

YU J Q, LU H, CHEN Q Q, et al. Dynamic changes of growth,digestion,metabolism,antioxidant and immune ability of Siniperca chuatsi during overwintering period[J]. Journal of Fisheries of China, 2025, 49(5):059610. (in Chinese)

[6]
LIM S J, OH D H, KHOSRAVI S, et al. Taurine is an essential nutrient for juvenile parrot fish Oplegnathus fasciatus[J]. Aquaculture, 2013, 414/415:274-279.

DOI

[7]
COUTINHO F, SIMÕES R, MONGE-ORTIZ R, et al. Effects of dietary methionine and taurine supplementation to low-fish meal diets on growth performance and oxidative status of European sea bass (Dicentrarchus labrax) juveniles[J]. Aquaculture, 2017, 479:447-454.

DOI

[8]
MORSHEDI V, RAINIS S, HAMEDI S, et al. Effects of dietary taurine amino acid on growth performance,mucosal and immune response,gene expression and antioxidant defence of Asian seabass (Lates calcarifer)[J]. Molecular Biology Reports, 2022, 49(5):3503-3510.

DOI

[9]
DEHGHANI R, OUJIFARD A, MOZANZADEH M T, et al. Effects of dietary taurine on growth performance,antioxidant status,digestive enzymes activities and skin mucosal immune responses in yellowfin seabream,Acanthopagrus latus[J]. Aquaculture, 2020, 517:734795.

DOI

[10]
LI M, LAI H, LI Q, et al. Effects of dietary taurine on growth,immunity and hyperammonemia in juvenile yellow catfish Pelteobagrus fulvidraco fed all-plant protein diets[J]. Aquaculture, 2016, 450:349-355.

DOI

[11]
SCHAFFER S, KIM H W. Effects and mechanisms of taurine as a therapeutic agent[J]. Biomolecules & Therapeutics, 2018, 26(3):225-241.

[12]
范泽, 李正伟, 刘庆武, 等. 水产动物牛磺酸营养研究进展[J]. 饲料工业, 2022, 43(20):47-52.

FAN Z, LI Z W, LIU Q W, et al. The research progress of taurine nutrition in aquatic animals[J]. Feed Industry, 2022, 43(20):47-52. (in Chinese)

[13]
LAMB C F, FINGER T E. Gustatory control of feeding behavior in goldfish[J]. Physiology & Behavior, 1995, 57(3):483-488.

DOI

[14]
HU J B, WANG Y J, LE Q J, et al. Transcriptomic analysis reveals olfactory-related genes expression in large yellow croaker (Larimichthys crocea) regulated by taurine:may be a good phagostimulant for all-plant protein diets[J]. Aquaculture Research, 2018, 49(2):1095-1104.

DOI

[15]
AL-FEKY S S A, EL-SAYED A F M, EZZAT A A. Dietary taurine enhances growth and feed utilization in larval Nile tilapia (Oreochromis niloticus) fed soybean meal-based diets[J]. Aquaculture Nutrition, 2016, 22(2):457-464.

DOI

[16]
ZHANG J Z, CHE C B, CAI M L, et al. Taurine improves health of juvenile rice field eel (Monopterus albus) fed with oxidized fish oil:involvement of lipid metabolism,antioxidant capacity,inflammatory response[J]. Aquaculture Reports, 2022, 27:101388.

DOI

[17]
ZHOU Y, LIANG X F, YUAN X C, et al. Neuropeptide Y stimulates food intake and regulates metabolism in grass carp,Ctenopharyngodon idellus[J]. Aquaculture, 2013,380-383:52-61.

[18]
HOLZER P, FARZI A. Peptide YY (PYY)[M]// HUHTANIEMII, MARTINIL. Encyclopediaof endocrine diseases. 2nd ed. Oxford: Academic Press, 2019:546-554.

[19]
齐国山. 饲料中牛磺酸、蛋氨酸、胱氨酸、丝氨酸和半胱胺对大菱鲆生长性能及牛磺酸合成代谢的影响[D]. 博士学位论文. 青岛: 中国海洋大学, 2012.

QI G S. Effects of dietary taurine,methionine,cystine,serine and cysteamine on growth performance and metabolism of taurine synthesis in turbot[D]. Ph.D.Thesis. Qingdao: Ocean University of China, 2012. (in Chinese)

[20]
刘兴旺, 麦康森, 刘付志国, 等. 动植物蛋白源及牛磺酸对大菱鲆摄食、生长及体组成的影响[J]. 中国海洋大学学报, 2018, 48(5):25-31.

LIU X W, MAI K S, LIUFU Z G, et al. Interactive effect of dietary taurine and protein sources on feed intake growth performance and body composition of turbot (Scophthalmus maximus)[J]. Periodical of Ocean University of China, 2018, 48(5):25-31. (in Chinese)

[21]
WILSON J M, CASTRO L F C. 1-morphological diversity of the gastrointestinal tract in fishes[M]// GROSELLM, FARRELLA P, BRAUNERC J. Themultifunctional gut of fish. Amsterdam: Academic Press, 2010:1-55.

[22]
WEN C Y, GUO Q P, WANG W L, et al. Taurine alleviates intestinal injury by mediating tight junction barriers in diquat-challenged piglet models[J]. Frontiers in Physiology, 2020, 11:449.

DOI PMID

[23]
CARPENTER G, WAHL M I. The epidermal growth factor family[M]// SPORNM B, ROBERTSA B. Peptide growth factors and their receptors I.Heidelberg: Springer, 1990:69-171.

[24]
WEN C Y, LI F N, ZHANG L Y, et al. Taurine is involved in energy metabolism in muscles,adipose tissue,and the liver[J]. Molecular Nutrition & Food Research, 2019, 63(2):e1800536.

[25]
SKOU J C. The (Na++K+) activated enzyme system and its relationship to transport of sodium and potassium[J]. Quarterly Reviews of Biophysics, 1974, 7(3):401-434.

PMID

[26]
张莉莉. 饲料中添加含氮小分子化合物及磷虾水解物对大菱鲆生长性能及相关基因表达的影响[D]. 硕士学位论文. 上海: 上海海洋大学, 2017.

ZHANG L L. Effects of dietary small molecular nitrogen compounds and krill hydrolysates on growth performance and expression of growth related genes of juvenile turbot (Scophthalmus maximus L.)[D]. Master’s Thesis. Shanghai: Shanghai Ocean University, 2017. (in Chinese)

[27]
YAN L C, FENG L, JIANG W D, et al. Dietary taurine supplementation to a plant protein source-based diet improved the growth and intestinal immune function of young grass carp (Ctenopharyngodon idella)[J]. Aquaculture Nutrition, 2019, 25(4):873-896.

DOI

[28]
ZHENG J M, ZHANG J L, ZHOU Y W, et al. Taurine alleviates experimental colitis by enhancing intestinal barrier function and inhibiting inflammatory response through TLR4/NF-κB signaling[J]. Journal of Agricultural and Food Chemistry, 2024, 72(21):12119-12129.

DOI PMID

[29]
SHI Y, ZHONG L, ZHONG H, et al. Taurine supplements in high-fat diets improve survival of juvenile Monopterus albus by reducing lipid deposition and intestinal damage[J]. Aquaculture, 2022, 547:737431.

DOI

[30]
邢晓丹, 张木子, 黎明, 等. 牛磺酸和甲硫氨酸亚砜亚胺对高血氨症大弹涂鱼氧化应激和炎症反应相关基因影响的比较研究[J]. 海洋与湖沼, 2018, 49(3):646-652.

XING X D, ZHANG M Z, LI M, et al. Comparison effects of taurine and methionine sulfoximine on genes involved in oxidative stress and inflammation of hyperammonemia mudskipper[J]. Oceanologia et Limnologia Sinica, 2018, 49(3):646-652. (in Chinese)

[31]
KIM S H, YUM H W, KIM S H, et al. Protective effects of taurine chloramine on experimentally induced colitis:NFκB,STAT3,and Nrf2 as potential targets[J]. Antioxidants, 2021, 10(3):479.

DOI

[32]
KIM C, CHA Y N. Taurine chloramine produced from taurine under inflammation provides anti-inflammatory and cytoprotective effects[J]. Amino Acids, 2014, 46(1):89-100.

DOI PMID

[33]
MARCINKIEWICZ J, KONTNY E. Taurine and inflammatory diseases[J]. Amino Acids, 2014, 46(1):7-20.

DOI PMID

[34]
虞为, 杨育凯, 林黑着, 等. 牛磺酸对花鲈生长性能、消化酶活性、抗氧化能力及免疫指标的影响[J]. 南方水产科学, 2021, 17(2):78-86.

YU W, YANG Y K, LIN H Z, et al. Effects of taurine on growth performance,digestive enzymes,antioxidant capacity and immune indices of Lateolabrax maculatus[J]. South China Fisheries Science, 2021, 17(2):78-86. (in Chinese)

[35]
QI G S, AI Q H, MAI K S, et al. Effects of dietary taurine supplementation to a casein-based diet on growth performance and taurine distribution in two sizes of juvenile turbot (Scophthalmus maximus L.)[J]. Aquaculture, 2012,358-359:122-128.

[36]
耿莉娜. 鲫鱼和黄鳝肝胰脏中胰蛋白酶的纯化、性质及蛋白分解活性的比较研究[D]. 硕士学位论文. 重庆: 重庆师范大学, 2008.

GENG L N. Comparative study on proteolytic activity,purification and characterization of trypsins from the hepatopancreas of erucian carp (Carassius auratus) and rice field eel (Monopterus albus)[D]. Master’s Thesis. Chongqing: Chongqing Normal University, 2008. (in Chinese)

Outlines

/