RESEARCH PAPER

Analysis of Nutritional Components and Intramuscular Fat Transcriptome in Longissimus Dorsi Muscle of Yudong Black Goats and Banjiao Goats

  • LI Jie ,
  • CHEN Cancan ,
  • LYU Shipeng ,
  • JIANG Jing ,
  • SUN Xiaoyan ,
  • WANG Gaofu ,
  • REN Hangxing , **
Expand
  • Chongqing Academy of Animal Sciences, Rongchang 402460, China
**professor, E-mail:

*Contributed equally

Received date: 2025-06-08

  Online published: 2026-04-14

Abstract

This experiment aimed to compare the differences in nutritional components in longissimus dorsi muscle between Yudong black goats and Banjiao goats, and to screen for genes related to intramuscular fat (IMF) deposition in goats through transcriptome sequencing (RNA-Seq). Six male Yudong black goats and six male Banjiao goats with similar body weight of (24.00±2.12) kg at 10 months of age under the same feeding and management conditions were selected. After 60 days of feeding (10 days for the pre-test period and 50 days for the formal test period), they were slaughtered. The longissimus dorsi muscle was collected to determine the nutritional components and perform RNA-Seq. The results showed as follows: 1) the IMF content in longissimus dorsi muscle of Yudong black goats was significantly higher than that of Banjiao goats (P<0.05), while the yellowness (b*) value and shear force were significantly lower than those of Banjiao goats (P<0.05). 2) There was no significant difference in the amino acid composition and contents in longissimus dorsi muscle between the two breeds of goats (P>0.05). The contents of vitamin E, zinc and total polyunsaturated fatty acids in longissimus dorsi muscle of Yudong black goats were significantly higher than those of Banjiao goats (P<0.05), while the contents of potassium, magnesium and total saturated fatty acids were significantly lower than those of Banjiao goats (P<0.05). 3) RNA-Seq analysis revealed that compared with Banjiao goats, the longissimus dorsi muscle of Yudong black goats had a total of 1 208 candidate differentially expressed genes (827 up-regulated and 381 down-regulated), which were significantly enriched in fat deposition-related pathways such as the peroxisome proliferator-activated receptor signaling pathway and fatty acid biosynthesis. Additionally, four candidate genes were further screened out: fatty acid desaturase 1 (FADS1), solute carrier family 27 member 1 (SLC27A1), peroxisome proliferator-activated receptor δ (PPARD), and perilipin 2 (PLIN2). 4) The verification results of real-time fluorescence quantitative PCR (RT-qPCR) were consistent with the results of RNA-Seq. The relative expression levels of FADS1 and SLC27A1 in longissimus dorsi muscle of Yudong black goats were significantly lower than those of Banjiao goats (P<0.05), and the relative expression levels of PPARD and PLIN2 in longissimus dorsi muscle were significantly higher than those of Banjiao goats (P<0.05). In conclusion, compared with Banjiao goats, Yudong black goats have richer muscle nutrients and better meat quality. The four fat deposition-related genes screened by RNA-Seq provide a reference for the regulatory mechanism of IMF deposition in meat-type goats.

Cite this article

LI Jie , CHEN Cancan , LYU Shipeng , JIANG Jing , SUN Xiaoyan , WANG Gaofu , REN Hangxing . Analysis of Nutritional Components and Intramuscular Fat Transcriptome in Longissimus Dorsi Muscle of Yudong Black Goats and Banjiao Goats[J]. Chinese Journal of Animal Nutrition, 2026 , 38(4) : 2979 -2993 . DOI: 10.12418/CJAN2026.239

我国是全球最大的肉类生产和消费国,随着居民生活水平的提高和膳食结构向健康化、品质化升级,羊肉消费需求持续增长,消费者对羊肉品质的关注已从单纯的数量满足转向对营养价值和食用品质的综合考量[1]。羊肉作为优质动物性食物来源,具有高蛋白质、低胆固醇特点,且富含必需氨基酸和微量元素,是膳食结构的重要组成部分[2]。然而,羊肉品质受品种、性别、年龄、饲养时间和管理水平等多种因素调控[3]。肌内脂肪(intramuscular fat,IMF)是肌肉组织内的脂质沉积,是决定羊肉嫩度、多汁风味等食用品质的核心指标,直接影响消费者的购买偏好[4]。研究发现,不同山羊品种IMF沉积能力存在显著差异,肉用品种(如波尔山羊)IMF含量较高,我国地方品种(如贵州黑山羊)IMF含量中等,乳用品种(如萨能山羊)IMF含量较低[5-6]。这些品种间差异可能与生长发育特性相关,但具体分子调控机制尚未完全阐明。转录组测序(transcriptome sequencing,RNA-Seq)作为一种高效的高通量技术,可全面获得特定物种在特定组织或细胞的基因表达谱及调控规律[7],为解析复杂性状的分子机制提供了有力工具。目前,该技术已广泛应用于山羊不同性状基因表达调控的研究,包括白山羊肌肉发育调控[8]、脂肪代谢[9]、泌乳性能[10]、繁殖特性[11]、肉品质差异[12]及色素沉积机制[13]等。
渝东黑山羊(Yudong black goat)和板角山羊(Banjiao goat)是重庆地区极具地方特色的山羊品种。渝东黑山羊主要分布在重庆武隆、涪陵和丰都等地,该羊身毛黑色,肉质细嫩、膻味轻,且适应性强、耐粗饲、生长较快,开发利用价值高,市场需求旺盛[14-15]。板角山羊主要分布在四川万源以及重庆武隆、城口和巫溪等地,该羊全身被毛白色、细短,以宽大扁平且向外翻卷的角为特征,具有产肉量多、膻味轻、皮张品质优等特点。目前,羊肉品质研究多集中于主流引进品种(如杜泊羊、波尔山羊),对我国地方特色品种(如渝东黑山羊和板角山羊)的肉品质形成机制的研究相对较少。基于此,本试验选取相同饲养条件下的渝东黑山羊和板角山羊为研究对象,通过比较两者背最长肌营养组分,结合RNA-Seq与结合生物信息学分析,筛选与IMF沉积相关的差异表达基因(differentially expressed genes,DEGs),并验证其组织表达特性,旨在为解析地方山羊IMF沉积的调控机制和肉品质改良提供理论依据。

1 材料与方法

1.1 试验设计和饲粮

试验选取10月龄、体重[(24.00±2.12) kg]相近、健康状况良好的渝东黑山羊和板角山羊公羊各6只,所有试验羊饲养管理条件一致。基础饲粮参考《肉羊营养需要量》(NY/T 816—2021)[16]配制,其组成及营养水平见表1。预试期10 d,正试期50 d。试验羊的饲养和使用经重庆市畜牧科学院动物福利委员会批准(批准编号:XKY-20230324)。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
苜蓿干草Alfalfa hay 20.00
玉米Corn 35.80
豆粕Soybean meal 15.00
膨化大豆Extruded soybean 5.00
玉米胚芽粕Corn germ meal 5.00
玉米干酒糟及其可溶物
Corn distillers dried grains with solubles
5.00
膨润土Bentonite 0.20
蒙脱石Montmorillonite 0.50
碳酸氢钠NaHCO3 0.80
食盐NaCl 0.50
石粉Limestone 0.40
磷酸氢钙CaHPO4 0.80
酵母培养物Yeast culture 8.00
预混料Premix1) 3.00
合计Total 100.00
营养水平Nutrient levels2)
干物质(风干基础)
Dry matter (air-dry basis)
85.59
代谢能ME/(MJ/kg) 10.59
粗蛋白质CP 16.16
粗纤维CF 9.39
钙Ca 0.81
磷P 0.52

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 12 000 IU,VD 2 000 IU,VE 40 IU,Fe 60 mg,Cu 8 mg,Mn 32 mg,Zn 56 mg,I 1.2 mg,Co 0.6 mg,Se 0.4 mg。

2)代谢能参考《肉羊营养需要量》(NY/T 816—2021)计算,其他营养水平为实测值。ME was a calculated value according to Nutritional Requirements of Meat-Type Sheep and Goat (NY/T 816—2021), while the other nutrient levels were measured values.

1.2 饲养管理

试验羊采用单栏饲养,每只羊活动空间≥2 m3。试验开始前,圈舍用2%氢氧化钠溶液进行彻底消毒,所有试验羊均完成耳标登记、免疫接种及驱虫处理。每天(09:00和17:00)采用全混合日粮(TMR)进行饲喂,并保证试验羊自由采食和饮水。

1.3 样品采集

所有试验羊于2024年11月1日至2024年11月2日进行屠宰,屠宰前需空腹24 h、停水2 h处理,屠宰后立即采集第12~13肋间背最长肌组织样品。其中,用于肉品质(pH、肉色、熟肉率、剪切力、IMF含量)测定的200 g肉样,装入无菌保鲜袋真空包装后于-20 ℃保存;用于营养组分检测的500 g肉样装入无菌保鲜袋真空包装后于4 ℃冷藏,及时带回实验室检测;用于RNA提取的2 g组织样品,装入冻存管后立即投入液氮速冻,转运至-80 ℃超低温冰箱保存。

1.4 指标测定

1.4.1 饲粮营养成分含量测定

饲粮中干物质(DM)、粗蛋白质(CP)、粗纤维(CF)、钙和磷含量分别参照《饲料中水分的测定》(GB/T 6435—2014)、《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)、《饲料中粗纤维的含量测定》(GB/T 6434—2022)、《饲料中钙的测定》(GB/T 6436—2018)和《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)中方法进行测定。

1.4.2 肉品质测定

背最长肌的肉色、pH、熟肉率指标的测定参照《畜禽肉质的测定》(NY/T 1333—2007)中方法进行。剪切力参照《肉嫩度的测定 剪切力测定法》(NY/T 1180—2006)中方法测定,具体操作:取背最长肌组织样品,修剪并剔除表面脂肪和结缔组织后,置于自封袋在80 ℃水浴锅中加热1 h,干燥后修剪为1.5 cm×1.0 cm×1.0 cm的测试样块,使用嫩度仪进行测定。IMF含量参照《食品安全国家标准 食品中脂肪的测定》(GB 5009.6—2016)中酸水解法测定。

1.4.3 肌肉营养组分测定

背最长肌氨基酸含量参照《食品安全国家标准 食品中氨基酸的测定》(GB 5009.124—2016)中方法测定;维生素A和维生素E含量参照《食品安全国家标准 食品中维生素A、D、E的测定》(GB 5009.82—2016)中方法标准;维生素B1含量参照《食品安全国家标准 食品中维生素B1的测定》(GB 5009.84—2016)中方法测定;维生素B2含量参照《食品安全国家标准 食品中维生素B2的测定》(GB 5009.85—2016)中方法测定;烟酸含量参照《食品安全国家标准 食品中烟酸和烟酰胺的测定》(GB 5009.89—2023)中方法测定;矿物质元素钾、钙、镁、磷、锰、铁、铜和锌含量参照《食品安全国家标准 食品中多元素的测定》(GB 5009.268—2016)中方法测定;硒含量参照《食品安全国家标准 食品中硒的测定》(GB 5009.93—2017)中方法测定。
背最长肌脂肪酸含量采用气相色谱-质谱(GC-MS)仪进行测定[17-18]。色谱条件:色谱柱为Thermo TG-FAME毛细管柱(50 m×0.25 mm×0.20 μm);进样口温度为250 ℃;升温程序为起始温度80 ℃(保持1 min),以20 ℃/min升至160 ℃(保持1.5 min),以3 ℃/min升至196 ℃(保持8.5 min),以20 ℃/min升至250 ℃(保持3 min);载气为氦气,流速为0.63 mL/min。质谱条件:Thermo ISQ 7000质谱仪(Thermo Fisher Scientific,美国),电子轰击电离(EI)源,选择性离子监测(SIM)扫描方式,电子能量为70 eV。

1.4.4 总RNA提取和文库构建

取50 mg背最长肌组织样品,经液氮研磨后,采用TRIzol试剂盒(Invitrogen,美国)提取总RNA。采用NanoDrop2000(Thermo Scientific,美国)测定RNA浓度,采用Agilent 2100生物分析仪(Agilent Technologies,美国)检测RNA完整性。取1 μg总RNA通过Oligo(dT)磁珠富集mRNA,采用NEBNext Ultra RNA Library Prep Kit(NEB,美国)构建文库。文库质检合格后,利用Illumina NovaSeq 6000平台进行双端150 bp测序。

1.4.5 RNA-Seq分析

原始数据经筛选过滤后得到高质量数据[净读数(clean reads)],采用HISAT2 v2.0.5软件与山羊参考基因组(Capra hircus ARS1.2)进行序列比对[19]。通过HTSeq v0.9.1统计每个基因的FPKM值(每千个碱基的转录每百万映射读取的片段数),结合StringTie软件进行转录本组装和定量。应用DESeq2 1.20.0软件筛选,筛选条件为|log2差异倍数(FC)|>1且P<0.05。

1.4.6 DEGs富集分析

采用R语言中clusterProfiler包对DEGs集进行基因本体(gene ontology,GO)功能和京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)通路富集分析,以P<0.05作为显著性富集阈值。

1.4.7 实时荧光定量PCR(RT-qPCR)验证分析

采用Transcriptor First Strand cDNA Synthesis Kit(Roche,德国)将组织总RNA反转录成cDNA,利用Universal SYBR Green Master(Roche,德国)进行RT-qPCR。反应体系(10 μL):模板cDNA 1.0 μL,正、反向引物各0.2 μL,预混液5.0 μL,双蒸水3.6 μL。反应条件:95 ℃预变性10 min;95 ℃变性15 s,60 ℃退火延伸30 s,共40个循环。选取4个候选基因,以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,采用2-ΔΔCt法计算候选DEGs的相对表达量,基因引物信息见表2
表2 引物信息

Table 2 Primer information

基因
Genes
引物序列
Primer sequences (5'—3')
扩增长度
Amplicon length/bp
脂肪酸去饱和酶1 FADS1 F:GTGGAGCTCGGGAAACAGAA
R:GCCAAGTCCACCCACTTCTT
152
溶质载体家族27成员1 SLC27A1 F:CTTACCGGACACCCAACTCC
R:AGGAGTAGTGCCCAAATGCC
191
过氧化物酶体增殖物激活受体δ PPARD F:GAGGGATGCAAGGGCTTCTT
R:CCGAAACGGATGGCATTGTG
164
围脂滴蛋白2 PLIN2 F:TGCCAAAGGGGCTATGACTG
R:CCACGGACTTGGTCTTCTCC
146
甘油醛-3-磷酸脱氢酶GAPDH F:CGTGTCCGTTGTGGATCTGA
R:TGAAGTCGCAGGAGACAACC
143

1.5 数据统计分析

试验数据采用SPSS 26.0软件进行统计分析,采用t检验进行差异显著性检验,以P<0.01为差异极显著,P<0.05为差异显著,P>0.05为差异不显著,结果数据以“平均值±标准差”表示。

2 结果与分析

2.1 渝东黑山羊和板角山羊肉品质比较

表3可知,与板角山羊相比,渝东黑山羊背最长肌IMF含量显著提高(P<0.05),背最长肌黄度(b*)值和剪切力显著降低(P<0.05)。2品种山羊间背最长肌pH、亮度(L*)值、红度(a*)值和熟肉率无显著差异(P>0.05)。
表3 渝东黑山羊和板角山羊肉品质比较

Table 3 Comparison of meat quality of Yudong black goats and Banjiao goats

项目
Items
渝东黑山羊
Yudong black goats
板角山羊
Banjiao goats
P
P-value
pH 6.25±0.41 6.37±0.04 0.196
亮度L* 34.11±4.13 33.42±0.68 0.239
红度a* 15.06±3.97 16.13±3.30 0.490
黄度b* 5.36±2.55b 6.78±1.93a 0.016
熟肉率Cooked meat rate/% 50.70±2.91 52.33±2.86 0.527
剪切力Shear force/N 46.99±4.50b 64.17±5.81a 0.028
肌内脂肪IMF/% 2.62±1.24a 1.78±0.35b 0.039

同行数据肩标不同大写字母表示差异极显著(P<0.01),不同小写字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。表4表6同。

In the same row, values with different capital letter superscripts mean extremely significant difference (P<0.01), and with different small letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as Table 4 to Table 6.

2.2 渝东黑山羊和板角山羊背最长肌氨基酸含量比较

表4可知,2品种山羊背最长肌中均检测出8种必需氨基酸(EAA)和8种非必需氨基酸(NEAA),且品种间均无显著差异(P>0.05)。EAA中苯丙氨酸(Phe)和异亮氨酸(Ile)含量较高,缬氨酸(Val)含量最低;NEAA中脯氨酸(Pro)含量最高,其次为谷氨酸(Glu),丝氨酸(Ser)含量最低。
表4 渝东黑山羊和板角山羊背最长肌氨基酸含量比较

Table 4 Comparison of amino acid contents in longissimus dorsi muscle of Yudong black goats and Banjiao goats %

项目
Items
渝东黑山羊
Yudong black goats
板角山羊
Banjiao goats
P
P-value
苏氨酸Thr 0.70±0.04 0.75±0.08 0.938
缬氨酸Val 0.34±0.03 0.38±0.06 0.897
蛋氨酸Met 0.70±0.05 0.75±0.08 0.930
异亮氨酸Ile 1.27±0.08 1.36±0.12 0.948
亮氨酸Leu 0.51±0.04 0.55±0.06 0.932
苯丙氨酸Phe 1.39±0.09 1.50±0.13 0.945
赖氨酸Lys 0.43±0.05 0.52±0.12 0.812
组氨酸His 0.98±0.06 1.06±0.08 0.947
天冬氨酸Asp 1.37±0.07 1.44±0.13 0.951
丝氨酸Ser 0.54±0.02 0.57±0.04 0.952
谷氨酸Glu 2.22±0.09 2.16±0.19 0.959
甘氨酸Gly 0.69±0.01 0.75±0.02 0.952
丙氨酸Ala 0.90±0.05 0.97±0.06 0.950
酪氨酸Tyr 0.64±0.03 0.68±0.05 0.953
精氨酸Arg 0.58±0.02 0.62±0.01 0.975
脯氨酸Pro 13.88±0.78 14.93±1.27 0.943
总氨基酸TAA 27.08±1.44 29.06±2.46 0.164
必需氨基酸EAA 6.31±0.43 6.86±0.72 0.183
非必需氨基酸NEAA 20.77±1.02 22.19±1.74 0.156

2.3 渝东黑山羊和板角山羊背最长肌维生素和矿物质元素含量比较

表5可知,渝东黑山羊背最长肌维生素E含量显著高于板角山羊(P<0.05),其他4种维生素含量在2品种间无显著差异(P>0.05)。板角山羊背最长肌钾和镁含量显著高于渝东黑山羊(P<0.05),锌含量显著低于渝东黑山羊(P<0.05),其他6种矿物质元素含量在2品种间无显著差异(P>0.05)。此外,2品种山羊背最长肌矿物质元素中钾含量最高,硒含量最低。
表5 渝东黑山羊和板角山羊背最长肌维生素和矿物质元素含量比较

Table 5 Comparison of vitamin and mineral element contents in longissimus dorsi muscle of Yudong black goats and Banjiao goats mg/kg

项目
Items
渝东黑山羊
Yudong black goats
板角山羊
Banjiao goats
P
P-value
维生素A Vitamin A 0.12±0.03 0.13±0.03 0.620
维生素E Vitamin E 6.78±0.92a 4.63±0.39b 0.027
维生素B1 Vitamin B1 0.33±0.12 0.37±0.19 0.681
维生素B2 Vitamin B2 4.14±0.23 4.21±0.38 0.703
烟酸Nicotinic acid 55.81±2.78 57.36±3.02 0.468
钾K 3 055.00±176.83b 3 340.00±60.83a 0.033
钙Ca 50.25±3.69 49.10±3.39 0.666
镁Mg 201.20±13.81b 238.00±16.97a 0.029
磷P 2 090.00±235.37 2 236.67±179.54 0.379
锰Mn 0.18±0.03 0.15±0.03 0.298
铁Fe 37.68±12.75 34.43±8.63 0.707
铜Cu 0.81±0.15 0.88±0.18 0.597
锌Zn 50.95±6.62a 39.75±0.92b 0.015
硒Se 0.05±0.00 0.04±0.01 0.387

2.4 渝东黑山羊和板角山羊背最长肌脂肪酸含量比较

表6可知,渝东黑山羊背最长肌总饱和脂肪酸(SFA)含量显著低于板角山羊(P<0.05),其中棕榈酸(C16∶0)含量显著高于板角山羊(P<0.05),硬脂酸(C18∶0)含量显著低于板角山羊(P<0.05)。2品种山羊背最长肌总单不饱和脂肪酸(MUFA)含量无显著差异(P>0.05),但渝东黑山羊背最长肌十七碳烯酸(C17∶1)含量极显著高于板角山羊(P<0.01),反-7-十九碳烯酸(C19∶1n-12t)含量显著高于板角山羊(P<0.05),反-10-十五烯酸(C15∶1t)和二十碳烯酸(C20∶1)含量显著低于板角山羊(P<0.05)。渝东黑山羊背最长肌总多不饱和脂肪酸(PUFA)含量极显著高于板角山羊(P<0.01),其中反亚油酸(C18∶2n-6t)、花生四烯酸(C20∶4n-6)和二十碳五烯酸(C20∶5n-3)含量显著高于板角山羊(P<0.05)。
表6 渝东黑山羊和板角山羊背最长肌脂肪酸含量比较

Table 6 Comparison of fatty acid contents in longissimus dorsi muscle of Yudong black goats and Banjiao goats μg/g

项目
Items
渝东黑山羊
Yudong black goats
板角山羊
Banjiao goats
P
P-value
饱和脂肪酸
SFA
己酸C6∶0 0.27±0.08 0.26±0.06 0.971
辛酸C8∶0 0.65±0.06 0.76±0.06 0.095
癸酸C10∶0 1.34±0.15 1.60±0.47 0.531
十一烷酸C11∶0 0.27±0.04 0.31±0.06 0.258
月桂酸C12∶0 2.72±0.37 3.43±0.36 0.075
十三烷酸C13∶0 0.73±0.21 0.74±0.21 0.940
肉豆蔻酸C14∶0 25.58±0.99 27.62±0.97 0.174
十五碳酸C15∶0 12.48±3.09 13.58±2.16 0.627
棕榈酸C16∶0 581.94±38.91a 390.60±61.10b 0.010
珍珠酸C17∶0 21.90±1.13 34.42±6.17 0.106
硬脂酸C18∶0 457.43±26.07b 717.15±115.24a 0.019
花生酸C20∶0 4.91±0.77 6.05±0.76 0.110
二十一碳酸C21∶0 1.02±0.19 1.32±0.42 0.153
山嵛酸C22∶0 1.83±0.32 1.64±0.09 0.377
二十三烷酸C23∶0 1.73±0.20 1.99±0.52 0.292
木蜡酸C24∶0 1.54±0.13 1.49±0.09 0.540
总含量Total content 1 116.30±57.50b 1 203.11±49.16a 0.018
单不饱和脂肪酸
MUFA
肉豆蔻烯酸C14∶1 1.53±0.40 1.81±0.65 0.490
反-9-肉豆蔻烯酸C14∶1t 0.98±0.08 1.05±0.14 0.317
十五碳烯酸C15∶1 5.50±0.83 5.68±0.39 0.643
反-10-十五烯酸C15∶1t 1.75±0.16b 1.98±0.10a 0.011
棕榈油酸C16∶1 98.26±7.13 79.06±10.30 0.110
反-9-棕榈油酸C16∶1t 17.39±2.87 20.40±3.65 0.323
十七碳烯酸C17∶1 75.49±8.92A 42.94±2.64B 0.008
反-10-十七烯酸C17∶1t 4.85±2.34 5.38±1.44 0.715
异油酸C18∶1n-7 23.59±1.97 28.11±4.82 0.314
反异油酸C18∶1n-7t 39.98±8.27 38.73±4.47 0.806
油酸C18∶1n-9 400.20±30.10 483.51±98.06 0.370
反油酸C18∶1n-9t 25.65±4.67 21.97±2.32 0.309
岩芹酸C18∶1n-12 294.66±13.62 226.64±61.21 0.265
反岩芹酸C18∶1n-12t 14.72±3.61 14.29±1.22 0.856
反-7-十九碳烯酸C19∶1n-12t 6.93±0.93a 3.03±1.28b 0.013
反-10-十九碳烯酸C19∶1n-9t 1.38±0.03 2.06±0.47 0.067
二十碳烯酸C20∶1 11.17±2.14b 16.69±3.72a 0.034
反-11-二十碳烯酸C20∶1t 1.45±0.28 1.71±0.13 0.108
二十二碳烯酸C22∶1n-9 4.99±0.93 5.82±1.75 0.335
巴惟酸C22∶1n-9t 3.35±0.70 3.62±0.50 0.458
二十四碳烯酸C24∶1 1.84±0.21 2.01±0.18 0.248
总含量Total content 1 014.36±31.15 982.19±30.42 0.100
多不饱和脂肪酸
PUFA
亚油酸C18∶2n-6 224.53±14.61 226.92±20.25 0.905
反亚油酸C18∶2n-6t 7.34±0.03a 3.39±0.73b 0.017
α-亚麻酸C18∶3n-3 25.34±1.66 22.21±0.42 0.088
γ-亚麻酸C18∶3n-6 3.09±0.57 2.83±0.61 0.485
花生二烯酸C20∶2 4.57±0.21 4.97±0.36 0.058
顺-11,14,17-二十碳三烯酸C20∶3n-3 1.99±0.23 2.28±0.26 0.069
二十碳三烯酸C20∶3n-6 14.26±1.47 13.88±0.95 0.629
花生四烯酸C20∶4n-6 175.83±5.44a 144.21±13.69b 0.032
二十碳五烯酸C20∶5n-3 53.91±0.14a 36.46±3.55b 0.020
顺-13,16-二十二碳二烯酸C22∶2 2.87±0.28 2.60±0.16 0.086
顺-7,10,13,16-二十二碳四烯酸C22∶4 5.66±0.37 5.80±0.85 0.750
二十二碳五烯酸C22∶5n-3 75.23±6.01 73.82±0.31 0.743
二十二碳六烯酸C22∶6n-3 23.06±3.13 20.20±0.70 0.197
二十二碳五烯酸C22∶5n-6 1.99±0.33 2.13±0.33 0.552
总含量Total content 619.12±10.81A 561.69±10.06B 0.001

2.5 渝东黑山羊和板角山羊背最长肌RNA-Seq结果分析

表7可知,采用Illumina NovaSeq 6000测序平台对渝东黑山羊和板角山羊背最长肌进行RNA-Seq,每组4个生物学重复。所有样本共产生460 903 170条clean reads,测序数据的Q20值(质量值≥20的碱基所占百分比)均在97.76%以上,Q30值(质量值≥30的碱基所占百分比)均在95.95%以上,表明测序数据的结果可靠,质量稳定,可用于后续分析。从序列比对结果来看,每个样本的clean reads与山羊参考基因组(Capra hircus ARS1.2)的比对率均达到98%以上,其中约92%的序列可唯一定位到参考基因组的基因区域。
表7 渝东黑山羊和板角山羊背最长肌RNA-Seq结果分析

Table 7 Analysis of RNA-Seq results in longissimus dorsi muscle of Yudong black goats and Banjiao goats

项目
Items
样本编号
Sample
No.
Q20值
Q20
value/%
Q30值
Q30
value/%
总读数
Total
reads
净读数
Clean
reads
比对率
Mapped
ratio/%
多重比对率
Multiple
mapped
ratio/%
唯一比对率
Unique
mapped
ratio/%
板角山羊
Banjiao goats
BY1 97.87 96.16 48 192 572 47 658 116 98.89 7.61 92.39
BY2 97.98 96.34 50 276 302 49 632 265 98.72 9.95 90.05
BY3 97.95 96.28 47 706 738 46 898 843 98.31 8.99 91.01
BY4 97.94 96.26 58 531 294 57 954 180 99.01 8.32 91.68
渝东黑山羊
Yudong black goats
HY1 97.77 95.97 45 085 686 44 620 529 98.97 6.82 93.18
HY2 97.76 95.95 42 615 184 42 106 888 98.81 6.97 93.03
HY3 97.90 96.18 45 099 026 37 305 350 98.89 6.73 93.27
HY4 97.81 96.04 37 718 556 35 148 846 98.92 5.94 94.06

2.6 渝东黑山羊和板角山羊背最长肌DEGs GO功能富集分析

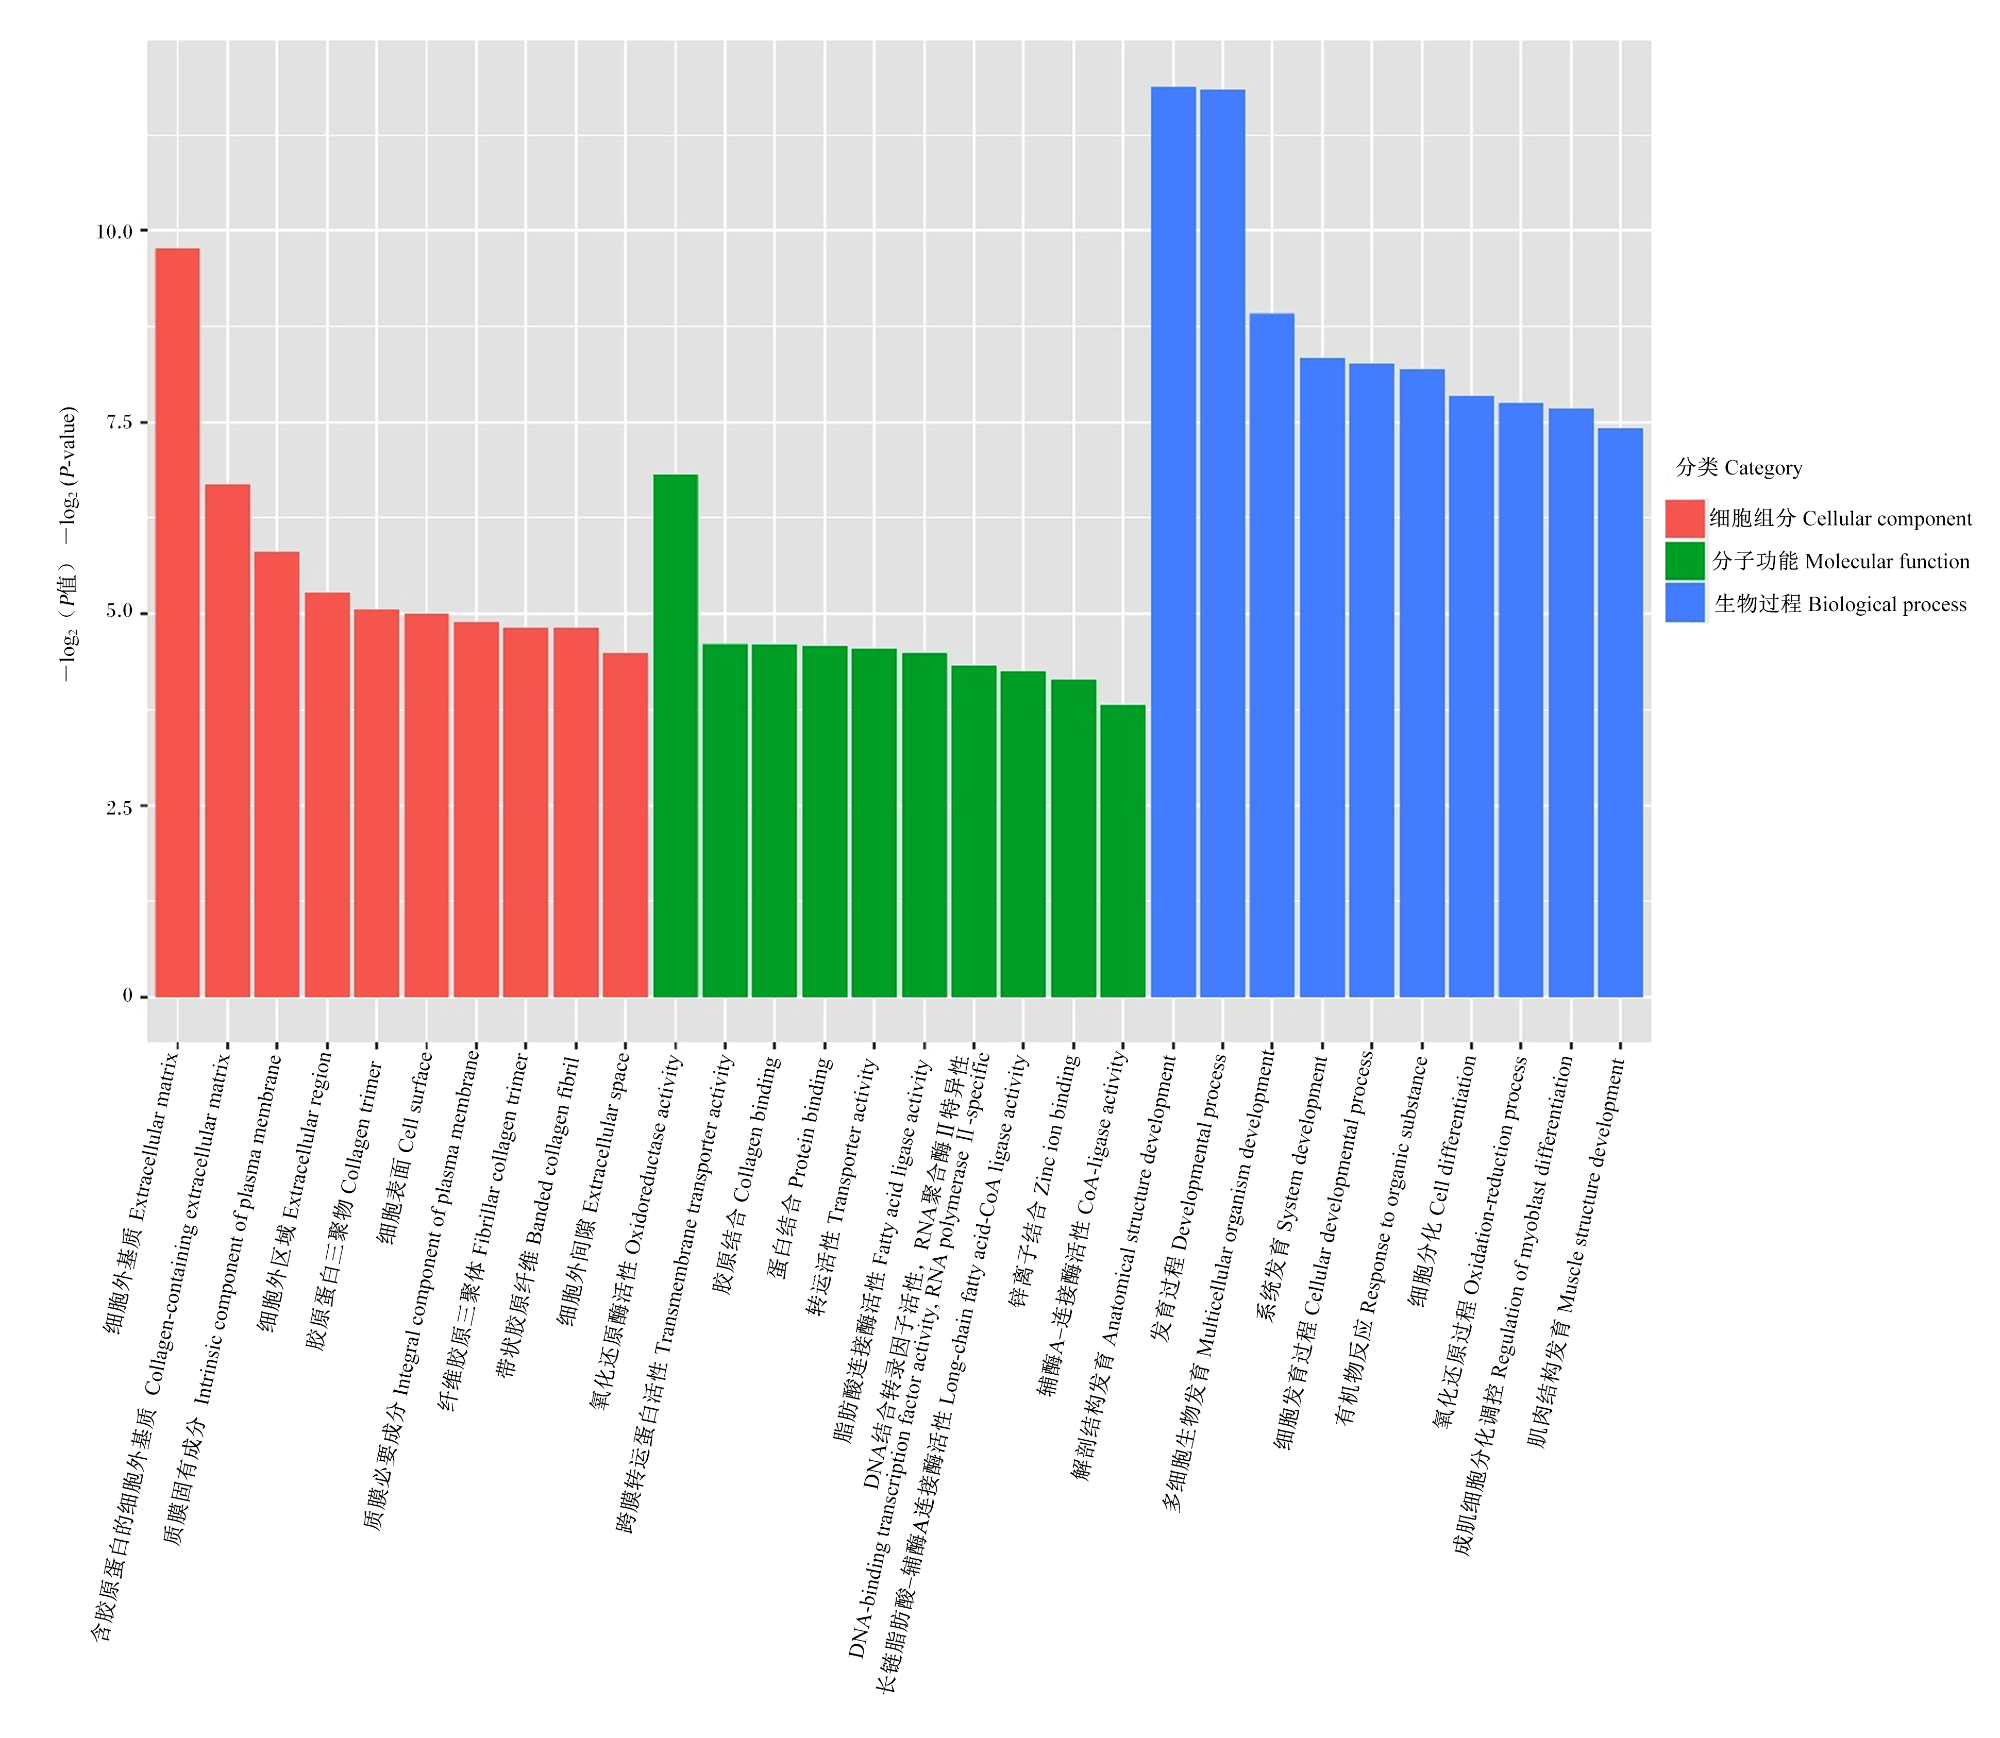
本试验中,与板角山羊相比,渝东黑山羊背最长肌共有1 208个候选DEGs,其中827个上调,381个下调。通过将DEGs注释到GO数据库中共显著富集在了43个GO条目,其中在分子功能、细胞组分和生物过程分类中,包含的亚类分别为1331、666和6425个。选取各分类中前10个条目绘制柱状图(图1),在生物过程分类中,参与细胞和生物过程的DEGs最多,数量分别为14 185和15 449个;在细胞组分分类中,细胞生物结构和细胞组分富集的DEGs最多,数量分别为15 753和15 910个;在分子功能分类中,DEGs主要参与生物结合、分子功能等过程,数量分别为12 112和16 114个。
图1 渝东黑山羊和板角山羊背最长肌DEGs GO功能富集分析

Fig.1 GO function enrichment analysis of DEGs in longissimus dorsi muscle of Yudong black goats and Banjiao goats

2.7 渝东黑山羊和板角山羊背最长肌DEGs KEGG通路富集分析

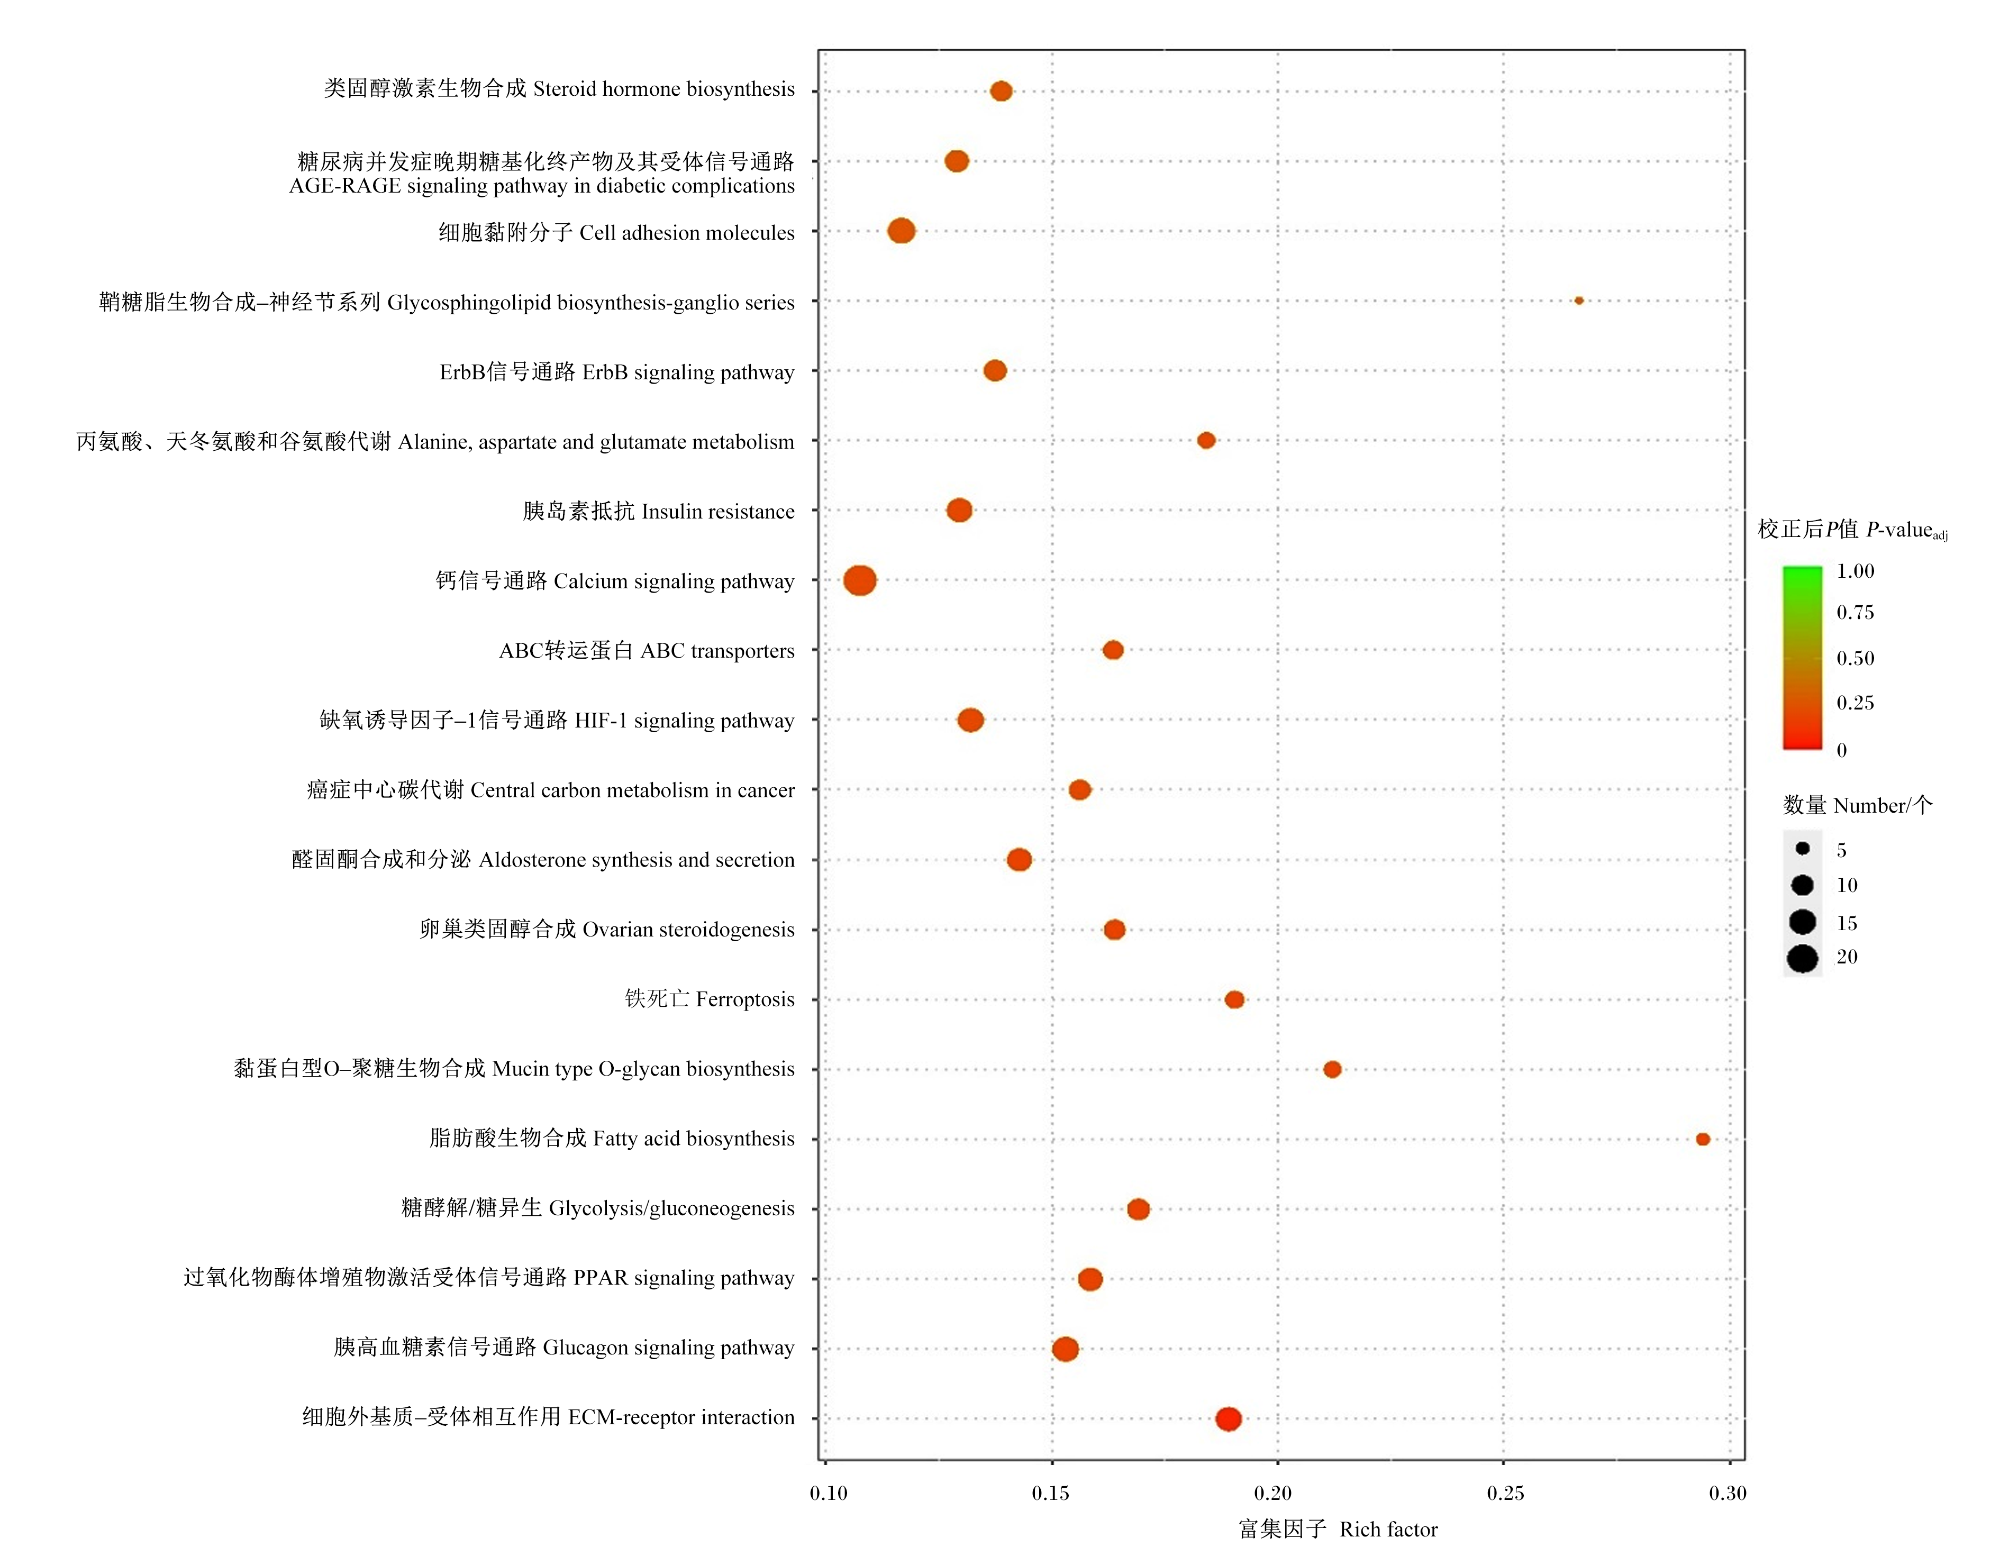
从KEGG通路富集分析中选取最显著的20个注释绘制气泡图(图2),结合Gene Cards在线查询基因功能注释,进一步筛选与IMF沉积相关的DEGs,结果显示这些基因主要富集在过氧化物酶体增殖物激活受体(PPAR)信号通路和脂肪酸生物合成通路中,数量分别为13和5个;同时,共鉴定出4个与IMF沉积相关的DEGs,分别为脂肪酸去饱和酶1(FADS1)、溶质载体家族27成员1(SLC27A1)、过氧化物酶体增殖物激活受体δ(PPARD)和围脂滴蛋白2(PLIN2)。由表8可知,与板角山羊相比,渝东黑山羊背最长肌PPARDPLIN2显著上调(P<0.05),背最长肌FADS1和SLC27A1显著下调(P<0.05)。
图2 渝东黑山羊和板角山羊背最长肌前20 KEGG通路富集气泡图

Fig.2 Bubble plot of top 20 KEGG pathway enrichment in longissimus dorsi muscle of

Yudong black goats and Banjiao goats

表8 渝东黑山羊和板角山羊背最长肌IMF沉积相关DEGs

Table 8 DEGs related to IMF deposition in longissimus dorsi muscle of Yudong black goats and Banjiao goats

基因
Genes
log2差异倍数
log2FC
校正后P
P-valueadj
KEGG通路
KEGG pathways
脂肪酸去饱和酶1
FADS1
-4.19 0.007 不饱和脂肪酸生物合成
Biosynthesis of unsaturated fatty acids
溶质载体家族27成员1
SLC27A1
-1.18 0.010 脂肪消化吸收Fat digestion and absorption;
过氧化物酶体增殖物激活受体信号通路
PPAR signaling pathway
过氧化物酶体增殖物激活受体δ
PPARD
1.14 0.044 Wnt信号通路Wnt signaling pathway;
过氧化物酶体增殖物激活受体信号通路
PPAR signaling pathway
围脂滴蛋白2
PLIN2
1.67 0.010 过氧化物酶体增殖物激活受体信号通路
PPAR signaling pathway

2.8 RT-qPCR验证分析

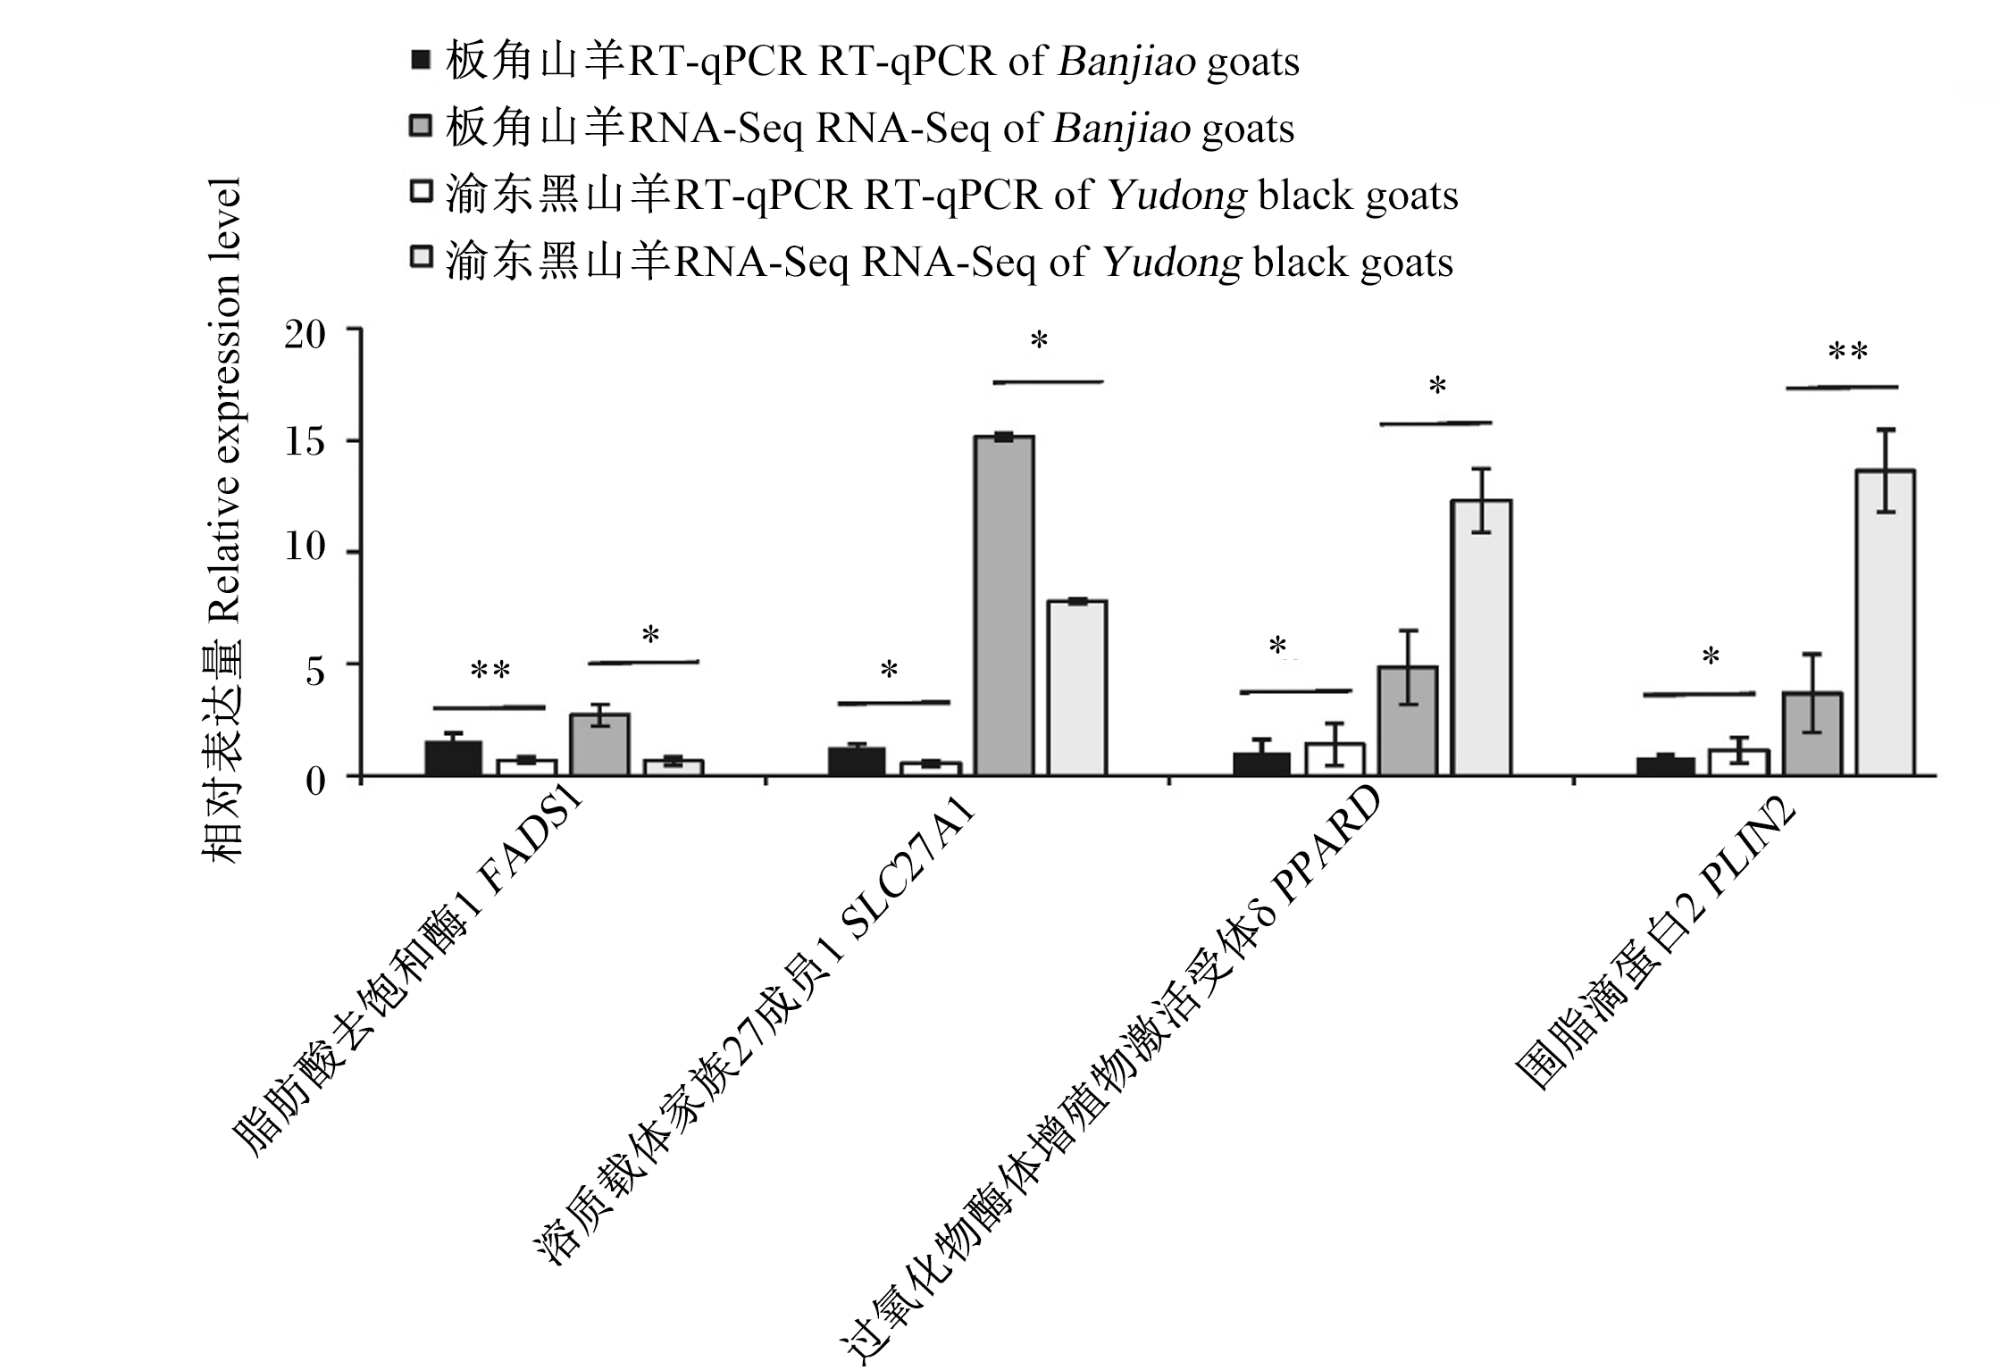
图3所示,RT-qPCR结果表明,渝东黑山羊背最长肌FADS1和SLC27A1相对表达量显著低于板角山羊(P<0.05),背最长肌PPARDPLIN2相对表达量显著高于板角山羊(P<0.05)。RT-qPCR验证结果与RNA-Seq结果相一致。
图3 渝东黑山羊和板角山羊背最长肌IMF沉积相关DEGs RT-qPCR分析

**表示差异极显著(P<0.01),*表示差异显著(P<0.05)。

Fig.3 RT-qPCR analysis of DEGs related to IMF deposition in longissimus dorsi muscle of Yudong black goats and Banjiao goats

** mean extremely significant difference (P<0.01), and * mean significant difference (P<0.05).

3 讨论

肉品质是影响消费者购买选择的关键因素,也是评判肉类优劣的重要指标。本研究中,渝东黑山羊和板角山羊背最长肌pH均处于正常范围(5.8~6.5),肉质新鲜度基本一致;渝东黑山羊背最长肌b*值更低,而b*值与脂肪含量呈负相关[20],这与渝东黑山羊背最长肌IMF含量显著高于板角山羊相对应,而IMF的积累可能通过影响肌肉色泽相关物质(如肌红蛋白稳定性)改善肉色表型。嫩度是决定肉品食用品质的关键因素,剪切力越低,表明嫩度越高[21]。渝东黑山羊背最长肌剪切力显著低于板角山羊,表明前者嫩度可能更优,这与IMF含量更高密切相关,IMF可减少肌肉结缔组织比例,而IMF含量的差异可能由脂滴形成和脂肪酸代谢基因的调控主导。本研究发现,渝东黑山羊背最长肌IMF含量[(2.62±1.24)%]显著高于板角山羊[(1.78±0.35)%],但与其他山羊品种对比,2品种山羊IMF含量处于较低水平,低于已有研究报道的贵州黑山羊[(6.00±0.16)%][22]和海门山羊[(5.07±0.12)%][23]。推测品种间IMF含量的差异,可能与不同山羊品种的遗传特性相关,品种自身的生理代谢与脂肪调控机制是重要影响因素。山羊的脂肪沉积模式与绵羊不同,其脂肪主要沉积于内脏器官(如肾周和肠系膜),胴体皮下脂肪和IMF含量较低[24]。因此,在山羊品种选育或肉质改良中,需结合肉质风味、IMF含量等核心目标性状,对其脂肪沉积特性进行综合考量。
氨基酸组成及含量是评价肉类蛋白质营养价值的关键指标。本研究表明,2品种间山羊肌肉氨基酸含量无显著差异,氨基酸组成高度相似,均具备丰富的优质蛋白质营养价值。肉类是人类获取维生素和矿物质的重要来源。2品种中渝东黑山羊背最长肌锌含量更高,板角山羊钾、镁含量更丰富,该差异可能与2品种特定离子转运基因表达差异相关。本研究显示,渝东黑山羊和板角山羊背最长肌中主要脂肪酸均为棕榈酸、硬脂酸、油酸、亚油酸和花生四烯酸,该结果与已有研究报道[25-26]一致。棕榈酸含量与肉风味呈正相关;硬脂酸含量则与风味呈负相关,其含量越高,羊肉膻味越明显。本研究中,渝东黑山羊背最长肌棕榈酸含量显著高于板角山羊,而硬脂酸含量显著低于板角山羊,表明其肉质膻味较轻、风味更佳,口感更优;且渝东黑山羊PUFA(α-亚麻酸及其代谢产物花生四烯酸和二十碳五烯酸)含量较高、SFA含量更低,表明该脂肪酸构成不仅有助于降低膻味、提升风味,还能增强心血管保护等健康价值[27-28]。2品种山羊肌肉脂肪酸组成的差异可能源于消化代谢、瘤胃微生物氢化能力和脂肪转运效率能力不同,进而影响肌肉脂肪酸沉积过程,最终导致肉品质差异。渝东黑山羊可能在风味、营养价值和健康效益方面优于板角山羊,具备较低的膻味、较高的功能性脂肪酸含量以及更优的脂肪酸比例。
为探究影响山羊品种间肉品质差异的关键分子机制,本试验对渝东黑山羊和板角山羊背最长肌进行RNA-Seq,筛选并确定了4个与脂肪沉积相关的关键基因:FADS1、SLC27A1、PPARDPLIN2,并进行后续定量验证。其中,FADS1和SLC27A1在渝东黑山羊背最长肌中呈现下调表达。脂肪组织在储存甘油三酯和释放脂肪酸过程中发挥关键作用,直接影响羊肉品质和风味特性。PUFA是动物体内重要的脂肪酸形式,FADS1在PUFA生物合成中起核心作用[29],其低表达却伴随PUFA富集,可能与PPARD等基因的协同激活有关,暗示山羊PUFA合成存在复杂的通路补偿机制。研究表明,地方猪FADS1参与脂肪代谢、糖异生和胰岛素信号通路调控[30],碱地黑牛FADS1促进肝脏脂肪酸合成并调控脂质沉积[31],山羊乳腺上皮细胞FADS1通过激活单磷酸腺苷活化蛋白激酶(AMPK)/固醇调节元件结合蛋白1(SREBP1)信号通路促进脂肪酸合成[32]。本研究发现,FADS1在渝东黑山羊背最长肌中表达量显著低于板角山羊,推测该基因可能通过调节脂肪沉积影响羊肉品质,是潜在的肉质调控候选基因。SLC27A1属于脂肪酸转运蛋白(FATP)家族成员,负责将脂肪酸转运至肌肉细胞,直接影响肌肉脂肪沉积的分布和含量,进而调控肉质嫩度、多汁性等特性。已有研究表明,晋南牛SLC27A1与肌肉脂肪沉积、生长速度和肉质参数(pH、剪切力、滴水损失等)呈显著相关[33],和牛、草原红牛SLC27A1与乙酰辅酶A乙酰转移酶(ACAT1)、甘油激酶2(GK2)等基因协同促进甘油三酯合成[34],土鸡SLC27A1通过PPAR信号通路调控风味物质己醛的生成[35]。本研究发现,SLC27A1在渝东黑山羊背最长肌中表达量显著低于板角山羊,其表达差异可能影响脂肪酸在肌肉中的沉积效率。虽与牛、鸡中的研究结果[34-35]存在差异,但可能是山羊品种特异性脂肪分配模式的体现(如更倾向于肌内而非皮下脂肪沉积)。基因通过脂肪酸转运还是通过合成/分解代谢途径影响羊肉品质,仍需进一步研究阐明。同时,PPARDPLIN2在渝东黑山羊背最长肌中呈现上调表达。PPARD属于PPAR家族,可通过内源性或合成激动剂激活,进而调控脂质合成与氧化代谢[36]。不同部位牛肉中PPARD表达差异与脂肪酸组成显著相关[37];黑安格斯牛PPARD表达量显著高于西门塔尔牛,且与优质肉质性状相关[38];PPARD参与山羊乳腺脂代谢的调控过程[39]。本研究发现,PPARD在渝东黑山羊背最长肌中表达量显著高于板角山羊,与上述研究结果一致。推测PPARD上调可通过激活PPAR信号通路[36],增强脂肪代谢效率,进而促进PUFA的合成和积累,这也解释了渝东黑山羊背最长肌PUFA含量更高的表型特征。PLIN2是脂滴包被蛋白,可促进细胞内脂滴的形成和稳定[40]。脂滴是细胞内储存中性脂质的重要细胞器,参与能量代谢平衡、脂毒性防护和细胞信号转导等过程。猪PLIN2对IMF沉积具有显著遗传效应,其亚型(PLIN-b)可能影响肥胖猪的脂肪分布模式[41],PLIN2调控秦川牛脂肪分化过程中的脂滴动态变化[42]。本研究发现,PLIN2在渝东黑山羊背最长肌中表达量较高,该基因可通过促进肌内脂滴形成和稳定,直接提高IMF含量,这与渝东黑山羊IMF含量更高、嫩度更优的表型一致。
通过RT-qPCR对上述4个关键基因相对表达量进行验证分析,2品种山羊间存在显著差异及可能的调控方向。FADS1在渝东黑山羊背最长肌中相对表达量极显著低于板角山羊,SLC27A1相对表达量显著低于板角山羊,这2个基因可能通过抑制脂肪合成或促进脂肪分解的方式,在山羊IMF沉积过程中发挥负调控作用。PPARDPLIN2在渝东黑山羊背最长肌中相对表达量均显著高于板角山羊,这2个基因可能通过促进脂滴形成或脂肪酸储存的途径,在山羊IMF沉积过程中发挥正调控作用。这些结果与RNA-Seq结果一致,进一步证实4个基因是山羊IMF沉积调控网络中的关键基因。后续将通过基因编辑、功能获得/缺失试验,明确这些候选基因对肉质性状(如IMF含量、脂肪酸组成)的具体调控机制,为山羊肉品质差异的分子机制解析提供更多依据。

4 结论

与板角山羊相比,渝东黑山羊肌肉营养组分丰富、肉品质较好;RNA-Seq分析发现,FADS1、SLC27A1、PPARDPLIN2可能与这2个本地品种山羊IMF沉积差异密切相关,为研究肉羊IMF沉积调控机制提供了参考。
[1]
丁存振, 王赞. 我国牛羊肉市场空间一体化及其网络结构研究[J]. 黑龙江畜牧兽医, 2024(10):10-17.

DING C Z, WANG Z. Research on spatial integration and network structure of Chinese beef and mutton market[J]. Heilongjiang Animal Science and Veterinary Medicine, 2024(10):10-17. (in Chinese)

[2]
贺娜, 孙睿哲, 邓玉婷, 等. 羊肉品质重要候选基因研究进展[J]. 家畜生态学报, 2024, 45(6):1-8.

HE N, SUN R Z, DENG Y T, et al. Research progress on important candidate genes affecting mutton quality[J]. Acta Ecologiae Animalis Domastici, 2024, 45(6):1-8. (in Chinese)

[3]
费雨婕, 许芳瑞, 廖锐, 等. 羊肉及其制品特征挥发性风味物质的研究进展[J]. 食品研究与开发, 2023, 44(24):201-207.

FEI Y J, XU F R, LIAO R, et al. Research progress on characteristic volatile flavor compounds of mutton and its products[J]. Food Research and Development, 2023, 44(24):201-207. (in Chinese)

[4]
PETHICK D W, HOCQUETTE J F, SCOLLAN N D, et al. Review:improving the nutritional,sensory and market value of meat products from sheep and cattle[J]. Animal, 2021, 15(Suppl.1):100356.

[5]
李银, 韦洋洋, 蒋钦杨, 等. 动物肌内脂肪沉积的影响因素及其分子机制[J]. 动物营养学报, 2024, 36(3):1502-1514.

DOI

LI Y, WEI Y Y, JIANG Q Y, et al. Affecting factors of intramuscular fat deposition in animals and their molecular mechanisms[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1502-1514. (in Chinese)

DOI

[6]
HOCQUETTE J F, GONDRET F, BAÉZA E, et al. Intramuscular fat content in meat-producing animals:development,genetic and nutritional control,and identification of putative markers[J]. Animal, 2010, 4(2):303-319.

DOI

[7]
CONESA A, MADRIGAL P, TARAZONA S, et al. Erratum to:a survey of best practices for RNA-Seq data analysis[J]. Genome Biology, 2016, 17(1):181.

DOI

[8]
LIN Y X, SUN L W, LV Y H, et al. Transcriptomic and metabolomic dissection of skeletal muscle of crossbred Chongming white goats with different meat production performance[J]. BMC Genomics, 2024, 25(1):443.

DOI

[9]
LI M M, MA N G, LUO S J, et al. Single-nucleus transcriptomes reveal the underlying mechanisms of dynamic whitening in thermogenic adipose tissue in goats[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):23.

DOI PMID

[10]
XUAN R, WANG J M, ZHAO X D, et al. Transcriptome analysis of goat mammary gland tissue reveals the adaptive strategies and molecular mechanisms of lactation and involution[J]. International Journal of Molecular Sciences, 2022, 23(22):14424.

DOI

[11]
韩浩园, 李世凯, 杨瑞巧, 等. 基于转录组测序挖掘槐山羊高繁关键候选基因[J]. 畜牧兽医学报, 2023, 54(12):5077-5090.

DOI

HAN H Y, LI S K, YANG R Q, et al. Mining key candidate genes for high reproduction performance of Huai goats based on transcriptome sequencing[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(12):5077-5090. (in Chinese)

[12]
SHEN J Y, HAO Z Y, WANG J Q, et al. Comparative transcriptome profile analysis of longissimus dorsi muscle tissues from two goat breeds with different meat production performance using RNA-Seq[J]. Frontiers in Genetics, 2021, 11:619399.

DOI

[13]
陈灿灿, 蒋婧, 孙晓燕, 等. 酉州乌羊五个组织的权重基因共表达网络分析[J]. 农业生物技术学报, 2023, 31(7):1450-1463.

CHEN C C, JIANG J, SUN X Y, et al. Weighted gene co-expression network analysis of five tissues in Youzhou dark goat (Capra hircus)[J]. Journal of Agricultural Biotechnology, 2023, 31(7):1450-1463. (in Chinese)

[14]
刘芝根. 发展渝东黑山羊大有可为[J]. 中国畜牧兽医文摘, 2017, 33(1):34.

LIU Z G. The development of Yudong black goats is promising[J]. Chinese Animal Husbandry and Veterinary Abstracts, 2017, 33(1):34. (in Chinese)

[15]
何晶晶, 张胜, 陈新. 渝东黑山羊品种资源调查报告[J]. 畜禽业, 2017, 28(8):24-25.

HE J J, ZHANG S, CHEN X. Investigation report on breed resources of Yudong black goats[J]. Livestock and Poultry Industry, 2017, 28(8):24-25. (in Chinese)

[16]
中华人民共和国农业农村部. 肉羊营养需要量:NY/T 816—2021[S]. 北京: 中国农业出版社, 2021.

Ministry of Agriculture of the People’s Republic of China. Nutritional requirements of meat-type sheep and goat:NY/T 816—2021[S]. Beijing: China Agriculture Press, 2021. (in Chinese)

[17]
HOVING L R, HEIJINK M, VAN HARMELEN V, et al. GC-MS analysis of medium- and long-chain fatty acids in blood samples[J]. Methods in Molecular Biology, 2018, 1730:257-265.

DOI PMID

[18]
BECCARIA M, FRANCHINA F A, NASIR M, et al. Investigation of mycobacteria fatty acid profile using different ionization energies in GC-MS[J]. Analytical and Bioanalytical Chemistry, 2018, 410(30):7987-7996.

DOI PMID

[19]
DONG Y, XIE M, JIANG Y, et al. Sequencing and automated whole-genome optical mapping of the genome of a domestic goat (Capra hircus)[J]. Nature Biotechnology, 2013, 31(2):135-141.

DOI PMID

[20]
黄琳琳, 张一敏, 朱立贤, 等. 蛋白质氧化和翻译后修饰对肉品质的影响及机制研究进展[J]. 食品科学, 2021, 42(9):241-247.

HUANG L L, ZHANG Y M, ZHU L X, et al. Advances in research of the effects and mechanisms of protein oxidation and post-translational modification on meat quality[J]. Food Science, 2021, 42(9):241-247. (in Chinese)

DOI

[21]
别雪, 陈大勇, 卫乐乐, 等. 杜蒙羊及其杂交羊生长性能和肉品质特性差异研究[J]. 动物营养学报, 2025, 37(5):3208-3220.

DOI

BIE X, CHEN D Y, WEI L L, et al. Study on differences in growth performance and meat quality characteristics of Dumeng sheep and their crossbred sheep[J]. Chinese Journal of Animal Nutrition, 2025, 37(5):3208-3220. (in Chinese)

DOI

[22]
骆金红, 刘凤丹, 谭晓山, 等. 贵州黑山羊不同肌肉组织FASN基因表达与肌内脂肪含量相关性分析[J]. 中国畜牧杂志, 2023, 59(5):162-165.

LUO J H, LIU F D, TAN X S, et al. Correlation analysis of FASN gene expression and intramuscular fat content in different muscle tissues of Guizhou black goats[J]. Chinese Journal of Animal Science, 2023, 59(5):162-165. (in Chinese)

[23]
谢恺舟, 陈书琴, 李洋静, 等. 海门山羊羊肉中肌苷酸与肌内脂肪沉积规律的研究[J]. 中国畜牧杂志, 2011, 47(23):18-21.

XIE K Z, CHEN S Q, LI Y J, et al. Study on the deposition pattern of inosine monophosphate and intramuscular fat in the meat of Haimen goats[J]. Chinese Journal of Animal Science, 2011, 47(23):18-21. (in Chinese)

[24]
TSHABALALA P A, STRYDOM P E, WEBB E C, et al. Meat quality of designated South African indigenous goat and sheep breeds[J]. Meat Science, 2003, 65(1):563-570.

DOI PMID

[25]
张明良, 雒瑞瑞, 王彩莲, 等. 澳洲白绵羊和杜泊羊与湖羊杂交的F1代体尺、器官重量及肌肉脂肪酸含量的比较研究[J]. 甘肃畜牧兽医, 2023, 53(6):82-87.

ZHANG M L, LUO R R, WANG C L, et al. A comparative study of body size,organ weight and muscle fatty acid content in F1 generation of Australian white sheep,Duper sheep and Hu sheep[J]. Gansu Animal and Veterinary Sciences, 2023, 53(6):82-87. (in Chinese)

[26]
王继卿, 沈继源, 刘秀, 等. 子午岭黑山羊与辽宁绒山羊产肉性能、肉品质、肌肉营养成分和脂肪酸含量比较[J]. 草业学报, 2021, 30(2):166-177.

DOI

WANG J Q, SHEN J Y, LIU X, et al. Comparative analysis of meat production traits,meat quality,and muscle nutrient and fatty acid contents between Ziwuling black goats and Liaoning cashmere goats[J]. Acta Prataculturae Sinica, 2021, 30(2):166-177. (in Chinese)

[27]
杨洋, 王清峰, 袁超, 等. 不同能量饲料对贵州黑山羊生长性能、屠宰性能、肉质性状、氨基酸及脂肪酸含量的影响[J]. 饲料研究, 2024, 47(7):1-6.

YANG Y, WANG Q F, YUAN C, et al. Effects of different energy feed on growth performance,slaughter performance,meat traits,amino acid,and fatty acid content of Guizhou black goats[J]. Feed Research, 2024, 47(7):1-6. (in Chinese)

[28]
FLEITH M, CLANDININ M T. Dietary PUFA for preterm and term infants:review of clinical studies[J]. Critical Reviews in Food Science and Nutrition, 2005, 45(3):205-229.

DOI

[29]
张丁丁, 李转见, 韩瑞丽, 等. 鸡FADS基因家族的生物信息学分析及表达调控[J]. 农业生物技术学报, 2020, 28(2):270-281.

ZHANG D D, LI Z J, HAN R L, et al. Bioinformatics analysis and expression regulation of chicken (Gallus gallus) FADS gene family[J]. Journal of Agricultural Biotechnology, 2020, 28(2):270-281. (in Chinese)

[30]
XING K, WANG K J, AO H, et al. Comparative adipose transcriptome analysis digs out genes related to fat deposition in two pig breeds[J]. Scientific Reports, 2019, 9(1):12925.

DOI PMID

[31]
陈振鹏, 刘瑞莉, 王胜, 等. 碱地黑牛FADS1基因克隆测序及表达分析[J]. 中国畜牧杂志, 2023, 59(5):92-98.

CHEN Z P, LIU R L, WANG S, et al. Cloning,sequencing and expression analysis of FADS1 gene in alkali land black cattle[J]. Chinese Journal of Animal Science, 2023, 59(5):92-98. (in Chinese)

[32]
HUANG J T, SHAO Y X, ZONG X Y, et al. FADS1 overexpression promotes fatty acid synthesis and triacylglycerol accumulation via inhibiting the AMPK/SREBP1 pathway in goat mammary epithelial cells[J]. Food & Function, 2022, 13(10):5870-5882.

[33]
WANG X, ZHANG Y Q, ZHANG X Z, et al. The comprehensive liver transcriptome of two cattle breeds with different intramuscular fat content[J]. Biochemical and Biophysical Research Communications, 2017, 490(3):1018-1025.

DOI PMID

[34]
LI G H, YANG R J, LU X, et al. RNA-Seq analysis identifies differentially expressed genes in the longissimus dorsi of Wagyu and Chinese Red Steppe cattle[J]. International Journal of Molecular Sciences, 2022, 24(1):387.

DOI

[35]
JIN Y X, YUAN X Y, ZHAO W J, et al. The SLC27A1 gene and its enriched PPAR pathway are involved in the regulation of flavor compound hexanal content in Chinese native chickens[J]. Genes, 2022, 13(2):192.

DOI

[36]
BIONAZ M, CHEN S W, KHAN M J, et al. Functional role of PPARs in ruminants:potential targets for fine-tuning metabolism during growth and lactation[J]. PPAR Research, 2013, 2013(1):684159.

[37]
ZHANG T L, NIU Q H, WANG T Z, et al. Comparative transcriptomic analysis reveals diverse expression pattern underlying fatty acid composition among different beef cuts[J]. Foods, 2022, 11(1):117.

DOI

[38]
马正旭, 虎红红, 封元, 等. 基于转录组筛选黑安格斯牛肉质性状关键调控基因[J]. 基因组学与应用生物学, 2021, 40(3):1031-1039.

MA Z X, HU H H, FENG Y, et al. Screening of key regulatory genes for beef quality traits in black Angus based on transcriptome sequencing[J]. Genomics and Applied Biology, 2021, 40(3):1031-1039. (in Chinese)

[39]
赵旺生, 袁梦, 李鹏程, 等. 北川山羊PPARD基因克隆及组织表达分析[J]. 基因组学与应用生物学, 2019, 38(7):2943-2948.

ZHAO W S, YUAN M, LI P C, et al. Cloning and tissue expression analysis of PPARD gene in Beichuan goat[J]. Genomics and Applied Biology, 2019, 38(7):2943-2948. (in Chinese)

[40]
DAHLHOFF M, CAMERA E, PICARDO M, et al. PLIN2,the major perilipin regulated during sebocyte differentiation,controls sebaceous lipid accumulation in vitro and sebaceous gland size in vivo[J]. Biochimica et Biophysica Acta, 2013, 1830(10):4642-4649.

[41]
WANG Q, JI C, HUANG J X, et al. The mRNA of lipin1 and its isoforms are differently expressed in the longissimus dorsi muscle of obese and lean pigs[J]. Molecular Biology Reports, 2011, 38(1):319-325.

DOI

[42]
李佩韦, 张薇依, 成功, 等. 秦川肉牛脂肪细胞PLIN2基因干扰siRNA筛选及过表达载体效率检测[J]. 中国畜牧兽医, 2021, 48(8):2727-2735.

DOI

LI P W, ZHANG W Y, CHENG G, et al. The selection of siRNA efficiency and detection of overexpression vector for PLIN2 gene of adipocytes in Qinchuan beef cattle[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(8):2727-2735. (in Chinese)

Outlines

/