RESEARCH PAPER

Mechanism of Taurine Alleviating Bovine Mammary Inflammation Based on Network Pharmacology, Molecular Docking and Molecular Dynamics Simulation

  • ZHOU Xiaojing , 1 ,
  • QU Yongli , 1, * ,
  • QU Jiachen 2 ,
  • WANG Guangmao 1 ,
  • ZHANG Xinyue 1 ,
  • KONG Fanzhi 1 ,
  • CUI Yizhe 1 ,
  • LI Lingyan 1 ,
  • HUANG Haihao 1
Expand
  • 1 Key Laboratory of Green and Low-Carbon Agriculture in the Northeast Plain, Ministry of Agriculture and Rural Affairs, College of Animal Science and Technology, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 College of Veterinary Medicine, Nanjing Agricultural University, Nanjing 210095, China
*professor, E-mail:

Received date: 2025-09-04

  Online published: 2026-04-14

Abstract

This study was conducted to investigate the mechanism of taurine alleviating bovine mammary inflammation through the application of network pharmacology, molecular docking and molecular dynamics simulation. The taurine related targets were obtained from databases TCMSP, SwissTargetPrediction, Drugbank and CTD, and the bovine mammary inflammation related targets were obtained from databases DisGeNET, OMIM and GeneCard. The Venny online software was used to identify intersecting targets between taurine and bovine mammary inflammation, and the STRING platform was employed to construct a protein-protein interaction (PPI) network diagram. The GO functional and KEGG pathway enrichment analyses were performed using the DAVID platform and the Cytoscape software. The taurine-bovine mammary inflammation-signaling pathway network was constructed using Cytoscape software. Molecular docking of the top 9 targets by degree ranking was conducted using AutoDock software, and the docking results were visualized with PyMOL software. Molecular dynamics simulations of the docking results were performed using Gromacs 2024 software under CUDA12.3 to gain deeper insights into the interaction strength and stability of receptor-ligand complexes. The results showed as follows: 1) a total of 232 intersecting targets between taurine and bovine mammary inflammation were obtained. 2) The PPI network of bovine mammary inflammation targets consists of 254 nodes and 598 edges. Nine core targets were screened out based on a degree value greater than or equal to 16, including heat shock protein 90-alpha (HSP90AA1), RAC-alpha serine/threonine-protein kinase (AKT1), proto-oncogene tyrosine-protein kinase (SRC), tyrosine-protein phosphatase non-receptor type 11 (PTPN11), mitogen-activated protein kinase 8 (MAPK8), epidermal growth factor receptor (EGFR), caspase-3 (CASP3), E3 ubiquitin-protein ligase (MDM2) and mitogen-activated protein kinase 1 (MAPK1). 3) The GO functional enrichment (P<0.05) obtained 373 biological processes (BP), 51 cellular components (CC) and 156 molecular functions (MF). The main KEGG signaling pathways include pathways in cancer, mitogen-activated protein kinase (MAPK) signaling pathway, phosphatidylinositol 3-kinase (PI3K)-protein kinase B (Akt) signaling pathway and forkhead transcription factor O subfamily protein (FoxO) signaling pathway. 4) The molecular docking results showed that taurine can spontaneously bind to core targets. The molecular dynamics simulations were performed to study the binding process of taurine molecules with HSP90AA1 and MAPK1, and key indicators (including root-mean-square deviation of small molecule-protein complexes, protein radius of gyration, solvent accessible surface area, hydrogen bond number and Gibbs free energy landscape) were evaluated, and the visualization results revealed stable binding. In summary, the main targets of taurine alleviating bovine mammary inflammation are screened through network pharmacology, molecular docking, and molecular dynamics simulations, providing theoretical basis for further application of taurine in dairy cow farming.

Cite this article

ZHOU Xiaojing , QU Yongli , QU Jiachen , WANG Guangmao , ZHANG Xinyue , KONG Fanzhi , CUI Yizhe , LI Lingyan , HUANG Haihao . Mechanism of Taurine Alleviating Bovine Mammary Inflammation Based on Network Pharmacology, Molecular Docking and Molecular Dynamics Simulation[J]. Chinese Journal of Animal Nutrition, 2026 , 38(4) : 3003 -3018 . DOI: 10.12418/CJAN2026.241

乳腺炎是奶牛关键生产性疾病之一,给奶业生产带来巨大损失,包括牛奶产量与质量下滑以及奶牛繁殖力减弱、死亡率攀升、治疗成本提高,对牧场而言是沉重的打击[1-6]。抗生素治疗奶牛乳腺炎虽能短期控制感染,但其引发的耐药性、生态环境隐患及食品安全问题已成为全球关注的公共卫生挑战。因而,推动天然药物等替代策略的研发与应用,对畜牧业绿色发展至关重要。牛磺酸(taurine)化学名称为2-氨基乙磺酸,化学式为C2H7NO3S,分子中包含1个氨基(-NH2)和1个磺酸基(-SO3H),结构式为NH2-CH2-CH2-SO3H,属于含硫的非蛋白质氨基酸,不参与蛋白质合成。牛磺酸广泛分布于人和动物的脑、心脏、肝脏、视网膜等组织中,是体内含量最丰富的游离氨基酸之一,约占人体重量的0.1%[7]。牛磺酸在医药、食品、畜禽生产与繁殖等领域有广泛的应用,在抗击炎症[8-9]、助力心血管健康[10-11]、改善高血压[12]、增强肌肉功能和延长运动力竭时间[13-14]、改善代谢[13]、维护眼睛健康[8]等多领域渗透。在畜禽养殖方面,从日常饲养环节促进畜禽生长发育、提升饲料转化率,到繁殖阶段改善种畜繁殖性能、保障幼崽健康存活,牛磺酸都发挥着重要作用[15-18]。而在水产养殖方面,无论是鱼类、虾类还是贝类等养殖品种,牛磺酸在增强水产动物免疫力、提高抗应激能力、优化生长性能等方面,都得到了大量实践应用[19-21]。牛磺酸被视为一种细胞保护分子,因为它能够维持正常的电子传递链、保持谷胱甘肽储备、上调抗氧化反应、增强膜稳定性、消除炎症并防止钙积累[22]。近期研究揭示,牛磺酸具有抗氧化、抗衰老、抗炎等功效,可清除自由基、延长动物寿命、调节炎症反应,还能重新激活耗竭的CD8+T细胞,提升癌症治疗效果,安全性高且环境友好[23-28]
网络药理学基于系统生物学、计算生物学及生物信息学等多学科融合,整合网络建模等技术,构建网络靶标与多靶点调控体系,赋能营养调控、药物发现与精准医疗[29-33]。本研究借助网络药理学,从理论层面预测牛磺酸调控奶牛乳腺炎的潜在作用靶点,挖掘牛磺酸缓解乳腺炎的核心靶点网络,开展基因本体(gene ontology,GO)功能和京都基因与基因组百科全书(Kyoto encyclopedia of genes and genomes,KEGG)通路富集分析,构建牛磺酸-奶牛乳腺炎症(bovine mammary inflammation,BMI)-信号通路网络;运用分子对接技术,将牛磺酸和筛选出来的核心靶点蛋白质结构进行逐一的分子对接,精准探究分子间的相互作用;利用分子动力学模拟技术,观察整个作用过程,解析牛磺酸与疾病相关的关键生物学途径,为全面解析补充牛磺酸缓解奶牛乳腺炎的潜在作用机制提供理论支撑。

1 材料与方法

1.1 牛磺酸靶点的筛选

通过TCMSP(https://www.tcmsp-e.com)、PharmMapper(https://www.lilab-ecust.cn/pharmmapper)、SwissTargetPrediction(http://www.swisstargetprediction.ch)、Drugbank(https://go.drugbank.com)、CTD数据库(https://ngdc.cncb.ac.cn/databasecommons/database)搜索牛磺酸靶点。利用Uniprot数据库(https://www.uniprot.org)以Excel表格形式下载相关蛋白,利用表格中的分列功能去掉冗余的基因名、半括号及中括号;利用“TRIM”函数删除基因名前导和尾随空格;利用Excel表格中的“VLOOKUP”函数,以“target name”为查找项,确定查找范围、返回列数,匹配条件为“FALSE”,以达到精确匹配,获得标准的基因名以备与疾病靶点取交集。通过DisGeNET(https://ngdc.cncb.ac.cn/databasecommons/database)、OMIM(https://www.omim.org)、GeneCard(https://www.genecards.org)数据库,以“bovine mastitis”“bovine breast inflammation”为关键词,搜索获得奶牛乳腺炎症相关靶点。利用Excel表格对筛选的靶点去除重复项,得到所需的牛磺酸-奶牛乳腺炎症基因相关靶点信息。

1.2 蛋白质-蛋白质相互作用(protein-protein interaction,PPI)网络的构建

将牛磺酸靶点和疾病靶点分别拷贝到Venny 2.1.0平台(https://bioinfogp.cnb.csic.es/tools/venny)中,获取牛磺酸与奶牛乳腺炎症的交集基因靶点,绘制Venn图;再将交集靶点拷贝到在线软件STRING(https://cn.string-db.org)中的“multiple protein”中,对筛选出的基因靶点进行PPI网络分析,拓扑参数最低相互作用分值(minimum required interaction score)分别选为0.7(高度置信)、0.9(最高置信),以TSV格式输出结果以备在Cytoscape 3.10.1软件中对PPI网络进行可视化分析,进一步构建牛磺酸-奶牛乳腺炎症靶点互作网络。

1.3 GO功能和KEGG通路富集分析

采用DAVID数据库(https://davidbioinformatics.nih.gov)结合Excel软件对牛磺酸缓解奶牛乳腺炎症核心靶点进行GO功能和KEGG富集分析,探求牛磺酸作用于奶牛乳腺炎症可能的生物学功能和主要信号通路。以Q<0.05为标准,按P值大小降序排列,筛选具有显著性差异的富集结果,分别输出GO功能和前20条KEGG通路的富集结果。

1.4 分子对接

在TCMSP数据库下载牛磺酸单体结构,在PDB数据库(https://www.rcsb.org)获取各核心靶点蛋白质的pdb结构,指定这些蛋白质为受体,牛磺酸为配体。通过PyMOL 3.1.4软件去除有机物,利用Autodock软件进行去水、加全氢处理、检查电荷。在选择小分子配体牛磺酸前,指定“AD4 type”,明确小分子配体“Root”,检测扭转键,选择扭转键。在此过程中,将蛋白质结构和小分子配体的格式从“.pdb”转换为“.pdbqt”,设置对接Box,导出为GPF格式,运行Autogrid4,设置对接参数及运算方法,将运行的结果文件利用OpenBabel软件从“.pdbqt”转换为“.pdb”,然后借助PyMOL软件进行可视化分析,图中标记氨基酸残基的名称和氢键长度。

1.5 分子动力学模拟

利用Gromacs2024在CUDA12.3环境下开展分子动力学模拟,以深入解析分子对接所得受体-配体复合物的相互作用强度与稳定性。模拟前通过Autodock获取蛋白质pdb文件及牛磺酸mol2文件,并利用Gromacs内置命令构建蛋白质分子结构与拓扑文件。为精准模拟生理环境,采用CHARMM力场与TIP3P水模型,多链蛋白通过merge整合。能量最小化阶段结合最速下降法与共轭梯度法,经10 000步优化至稳定构象。继而进行宏观正则系综(NVT)与等温等压系综(NPT)预平衡,以2 fs步长运行1 ns(1×10⁶步)。平衡后系统在310 K下开展100 ns(5×10⁷步)分子动力学模拟,轨迹提取时校正跳跃以确保复合物完整性,并去除周期性边界条件。评估均方根偏差(root mean square deviation,RMSD)、均方根涨落(root mean square fluctuation,RMSF)、蛋白质回转半径(radius of gyration,Rg)、溶剂可及表面积(solvent accessible surface area,SASA)、氢键数量及吉布斯自由能图谱(Gibbs energy free landscape)等关键指标,并展示可视化结果。

2 结果

2.1 牛磺酸缓解奶牛乳腺炎症的靶点筛选

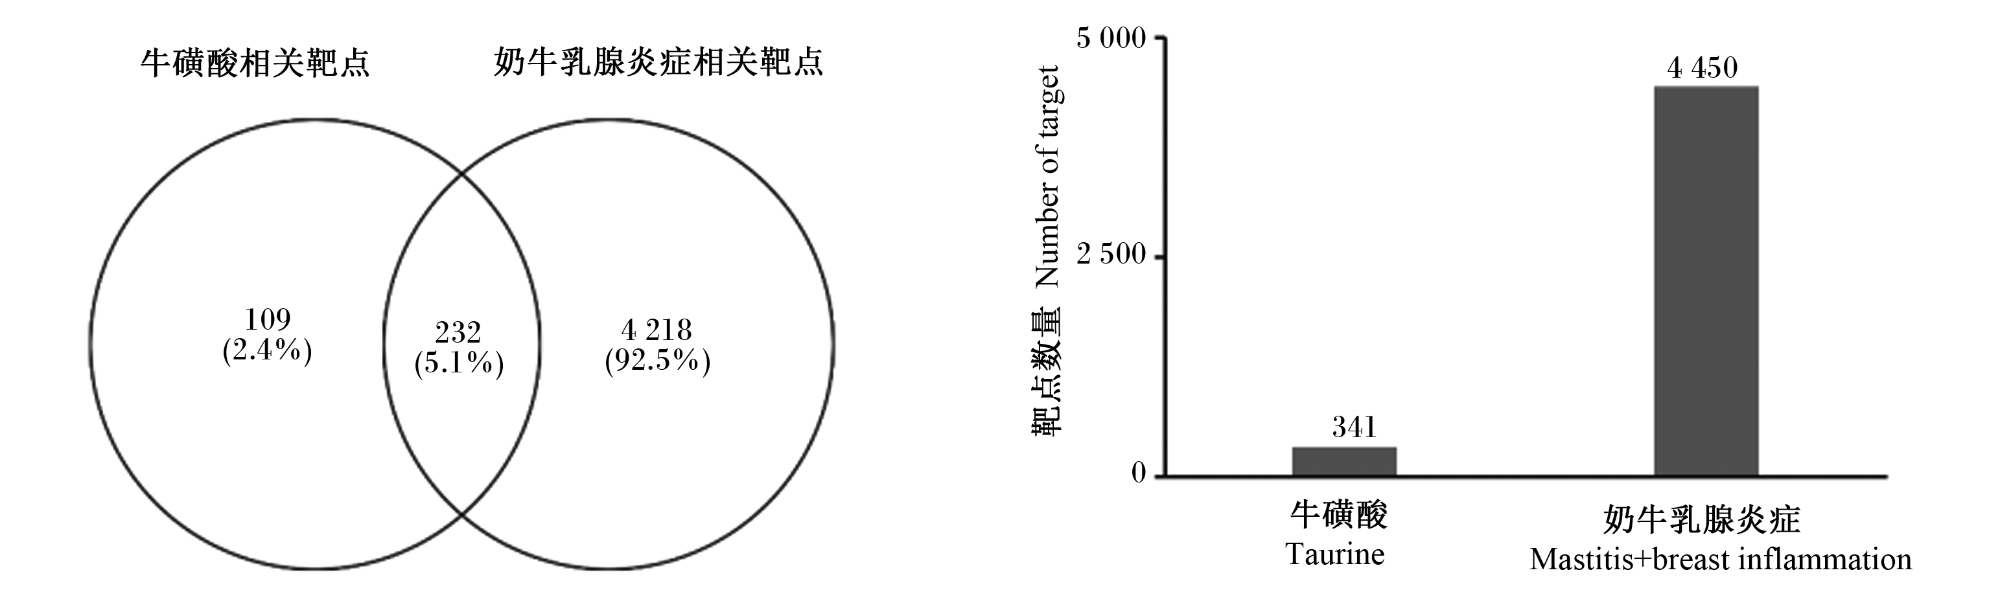
图1所示,通过搜索TCMSP、PharmMapper、SwissTargetPrediction、Drugbank、CTD数据库,剔除重复项后共获得牛磺酸相关靶点341个。通过搜索DisGeNET、OMMID、GeneCard数据库,共获得奶牛乳腺炎症相关靶点4 450个。然后通过Venny在线软件得到牛磺酸和奶牛乳腺炎症交集靶点232个。
图1 牛磺酸缓解奶牛乳腺炎症的交集靶点Venn图

Fig.1 Venn diagram of intersection targets for taurine alleviating bovine mammary inflammation

2.2 牛磺酸缓解奶牛乳腺炎症的PPI网络构建

图2所示,将232个交集靶点导入STRING数据库,通过Cytoscape 3.10.1软件对PPI网络进行可视化分析。拓扑参数最低相互作用分值分别选为0.7(高度置信)、0.9(最高置信),参数度值代表每个节点的重要性,度值与节点颜色深浅及节点大小呈正相关,即节点越大,颜色越深,其度值越大,得到核心靶点PPI网络图。牛磺酸-奶牛乳腺炎症核心靶点PPI网络基本信息见表1
图2 牛磺酸核心靶点PPI网络图(置信度分别为0.7、0.9)

仅注释核心靶点 only annotated core targets。HSP90AA1:热休克蛋白90-α heat shock protein 90-alpha;AKT1:RAC-α丝氨酸/苏氨酸蛋白激酶 RAC-alpha serine/threonine-protein kinase;SRC:原癌基因酪氨酸蛋白激酶 proto-oncogene tyrosine-protein kinase;PTPN11:非受体型蛋白酪氨酸磷酸酶11 tyrosine-protein phosphatase non-receptor type 11;MAPK8:丝裂原活化蛋白激酶8 mitogen-activated protein kinase 8;EGFR:表皮生长因子受体 epidermal growth factor receptor;CASP3:胱天蛋白酶3 Caspase-3;MDM2:E3泛素-蛋白连接酶 E3 ubiquitin-protein ligase;MAPK1:丝裂原活化蛋白激酶1 mitogen-activated protein kinase 1。图5同 the same as Fig.5

Fig.2 Taurine core target PPI network map (confidence levels were 0.7 and 0.9)

表1 牛磺酸-奶牛乳腺炎症核心靶点PPI网络基本信息

Table 1 Basic information on core target PPI network of taurine-bovine mammary inflammation

置信度
Confidence
levels
节点数
Number of
nodes
边数
Number of
edges
平均度值
Average degree
value
平均边数
Average edge
PPI富集P
PPI enrichment
P-value
0.7 230 634 5.51 236 <0.000 1
0.9 230 268 2.33 94 <0.000 1
以度值≥16筛选出9个核心靶点,它们与其他蛋白质相互作用更强些,在该网络中发挥了关键作用,牛磺酸-奶牛乳腺炎症核心靶点及其拓扑参数见表2
表2 牛磺酸-奶牛乳腺炎症核心靶点及其拓扑参数

Table 2 Core targets and their topological parameters of taurine-bovine mammary inflammation

核心靶点
Core targets
蛋白质类别
Protein type
度值
Degree value
中介系数中心性
Betweenness
centrality
接近度中心性
Closeness
centrality
热休克蛋白90-α HSP90AA1 酶调节剂 40 0.58 0.44
RAC-α丝氨酸/苏氨酸蛋白激酶AKT1 激酶 38 0.52 0.42
原癌基因酪氨酸蛋白激酶SRC 激酶 38 0.52 0.44
非受体型蛋白酪氨酸磷酸酶11 PTPN11 水解酶 34 0.15 0.39
丝裂原活化蛋白激酶8 MAPK8 激酶 18 0.02 0.35
表皮生长因子受体EGFR 激酶 18 0.11 0.37
胱天蛋白酶3 CASP3 水解酶 17 0.08 0.39
E3泛素-蛋白连接酶MDM2 泛素转移酶 16 0.15 0.37
丝裂原活化蛋白激酶1 MAPK1 激酶 16 0.07 0.36

2.3 核心靶点富集分析与可视化

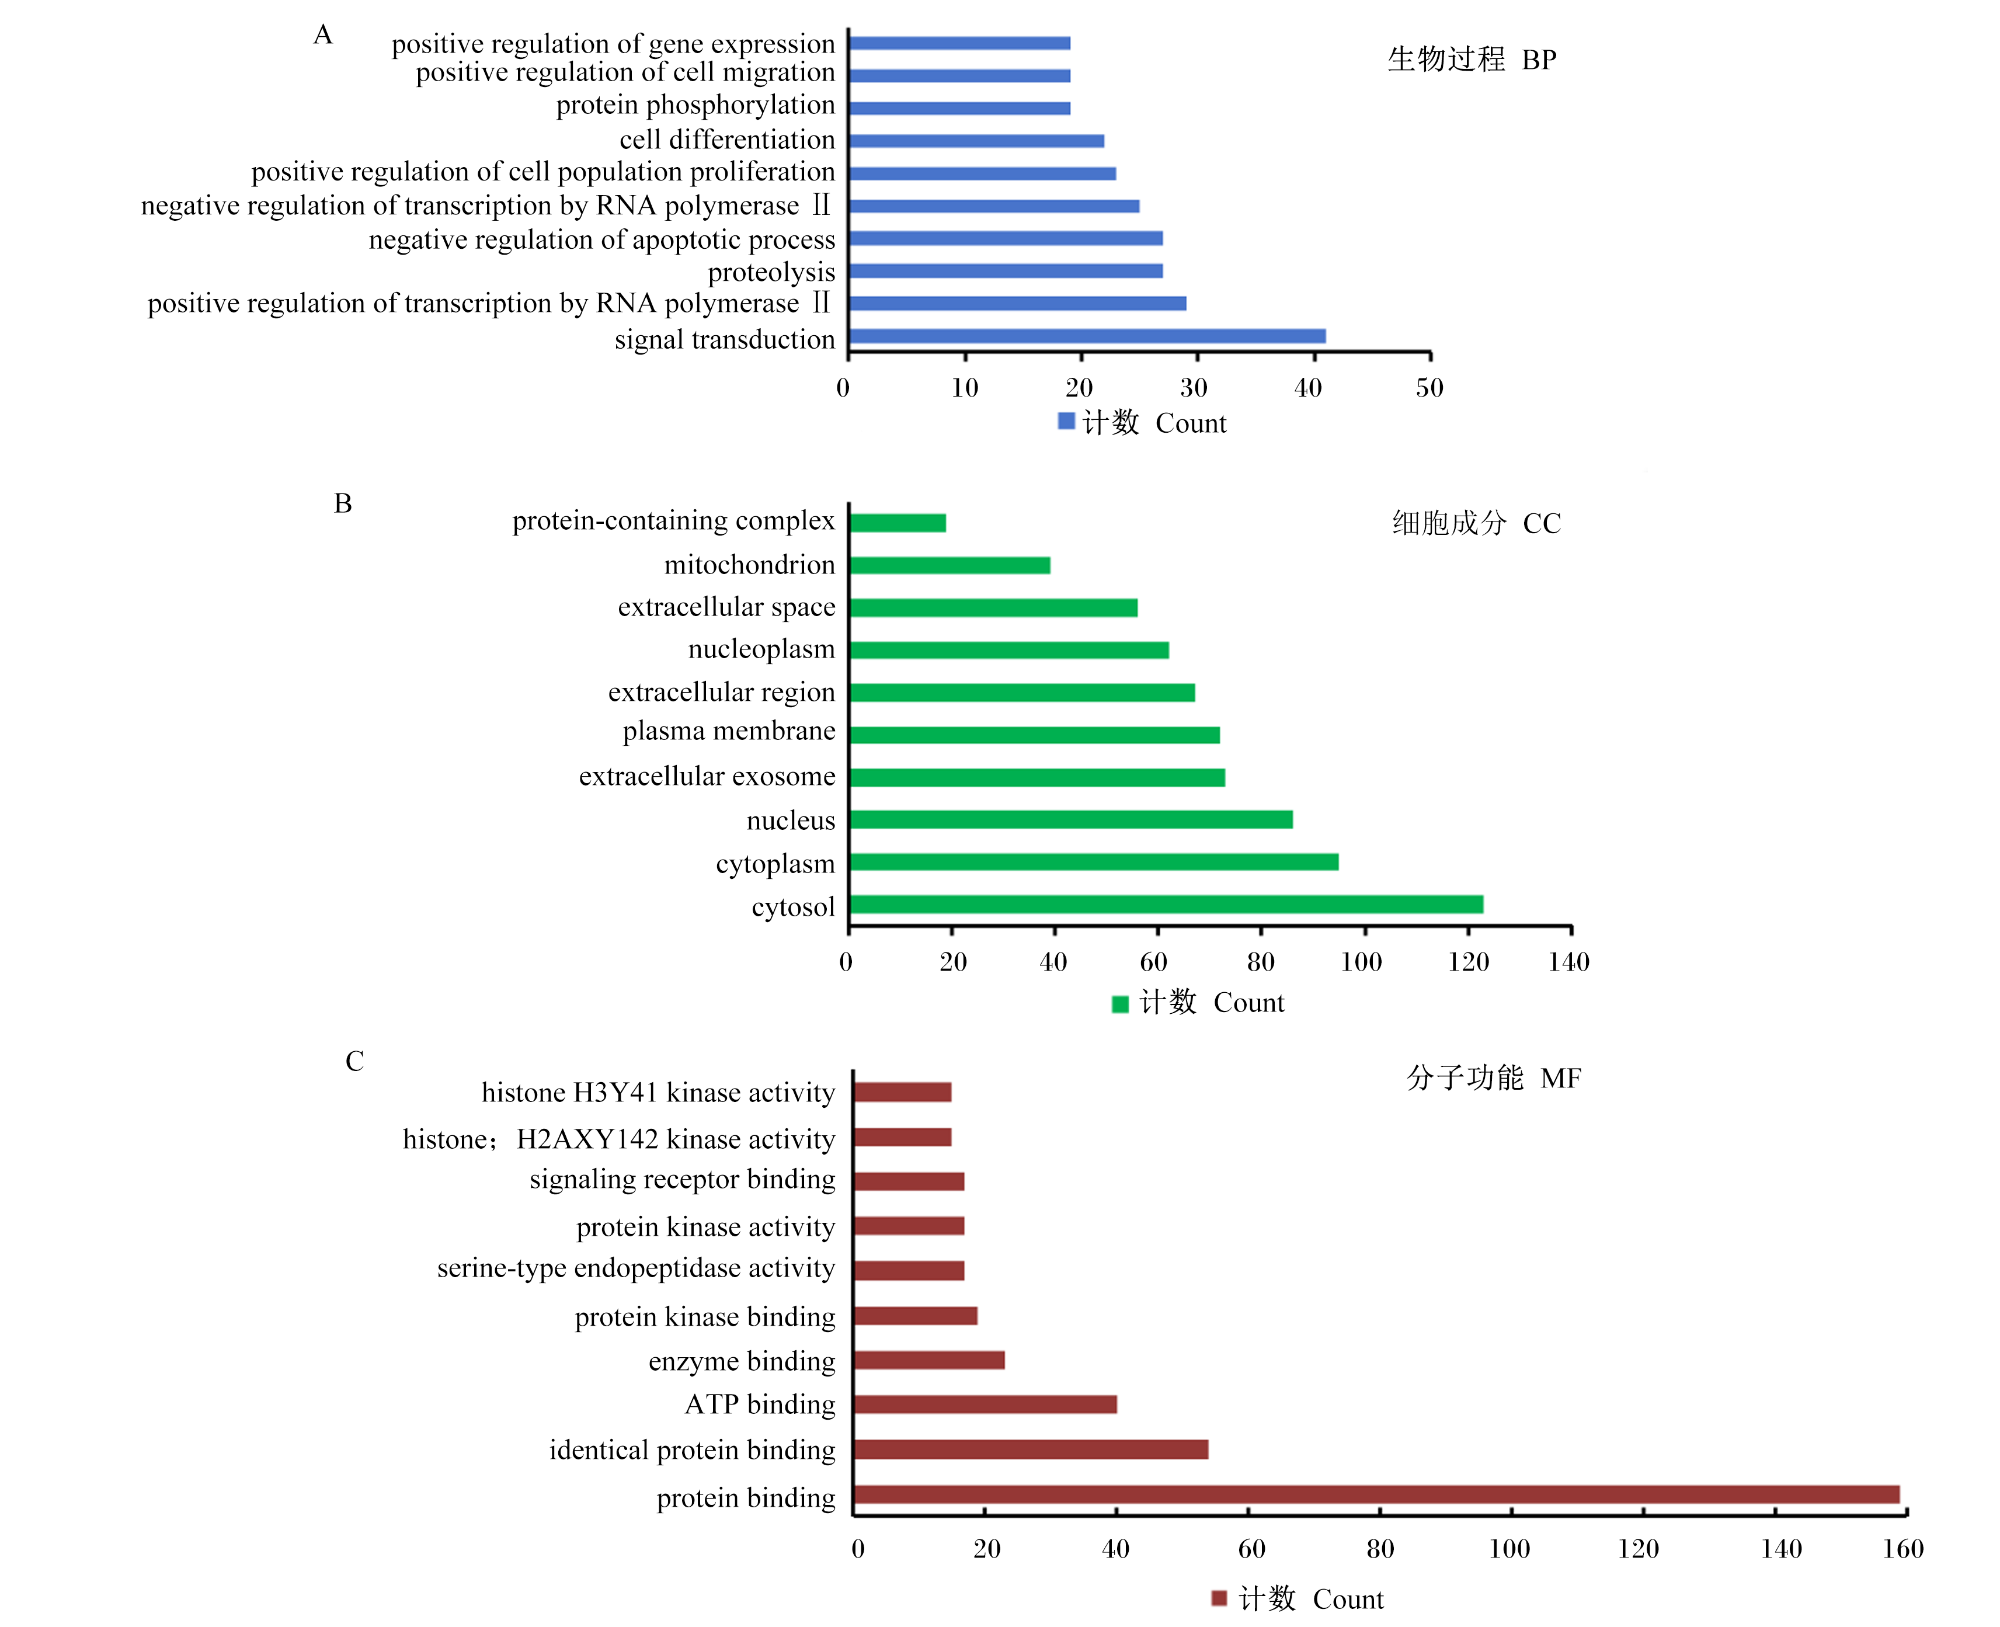
GO功能富集分别获得P<0.05的生物过程(biological process,BP)373种,细胞成分(cellular component,CC)51种,分子功能(molecular function,MF)156种。对DAVID数据库生成的BP数据集,将伪发现率(false discovery rate,FDR)转换成-log10后,按降序排序,取排名前10绘制GO功能图,从而筛选出具有显著差异的富集结果,按计数降序排列后取排名前10可得BP通路的绘图。同理可得CC、MF通路的绘图。如图3所示,牛磺酸-奶牛乳腺炎症交集靶点的GO功能富集结果中,BP主要富集于信号转导(signal transduction)、RNA聚合酶Ⅱ介导的转录正向调控(positive regulation of transcription by RNA polymerase Ⅱ)、蛋白质水解(proteolysis)、细胞凋亡过程的负向调控(negative regulation of apoptotic process)、细胞群体增殖的正向调控(positive regulation of cell population proliferation)、细胞分化(cell differentiation)、蛋白质磷酸化(protein phosphorylation)、细胞迁移的正向调控(positive regulation of cell migration)、基因表达的正向调控(positive regulation of gene expression)等。CC主要富集于胞质溶胶(cytosol)、细胞质(cytoplasm)、细胞核(nucleus)、细胞外外泌体(extracellular exosome)、线粒体(mitochondrion)、含蛋白质复合物(protein-containing complex)等。MF主要富集于蛋白质结合(protein binding)、ATP结合(ATP binding)、酶结合(enzyme binding)、蛋白激酶结合(protein kinase binding)、丝氨酸型内肽酶活性(serine-type endopeptidase activity)、蛋白激酶活性(protein kinase activity)、信号受体结合(signaling receptor binding)、组蛋白H2AXY142激酶活性(histone H2AXY142 kinase activity)、组蛋白H3Y41激酶活性(histone H3Y41 kinase activity)等。
图3 核心靶点的GO功能富集分析

图A Fig.A。signal transduction:信号转导;positive regulation of transcription by RNA polymerase Ⅱ:RNA聚合酶Ⅱ介导的转录正向调控;proteolysis:蛋白质水解;negative regulation of apoptotic process:细胞凋亡过程的负向调控;negative regulation of transcription by RNA polymerase Ⅱ:RNA聚合酶Ⅱ介导的转录负调控;positive regulation of cell population proliferation:细胞群体增殖的正向调控;cell differentiation:细胞分化;protein phosphorylation:蛋白质磷酸化;positive regulation of cell migration:细胞迁移的正向调控;positive regulation of gene expression:基因表达的正向调控。

图B Fig.B。cytosol:胞质溶胶;cytoplasm:细胞质;nucleus:细胞核;extracellular exosome:细胞外外泌体;plasma membrane:质膜;extracellular region:细胞外区域;nucleoplasm:核质;extracellular space:细胞外空间;mitochondrion:线粒体;protein-containing complex:含蛋白质复合物。

图C Fig.C。protein binding:蛋白质结合;identical protein binding:相同蛋白质结合;ATP binding:ATP结合;enzyme binding:酶结合;protein kinase binding:蛋白激酶结合;serine-type endopeptidase activity:丝氨酸型内肽酶活性:protein kinase activity;蛋白激酶活性;signaling receptor binding:信号受体结合;histone H2AXY142 kinase activity:组蛋白H2AXY142激酶活性;histone H3Y41 kinase activity:组蛋白H3Y41激酶活性。

Fig.3 GO functional enrichment analysis of core targets

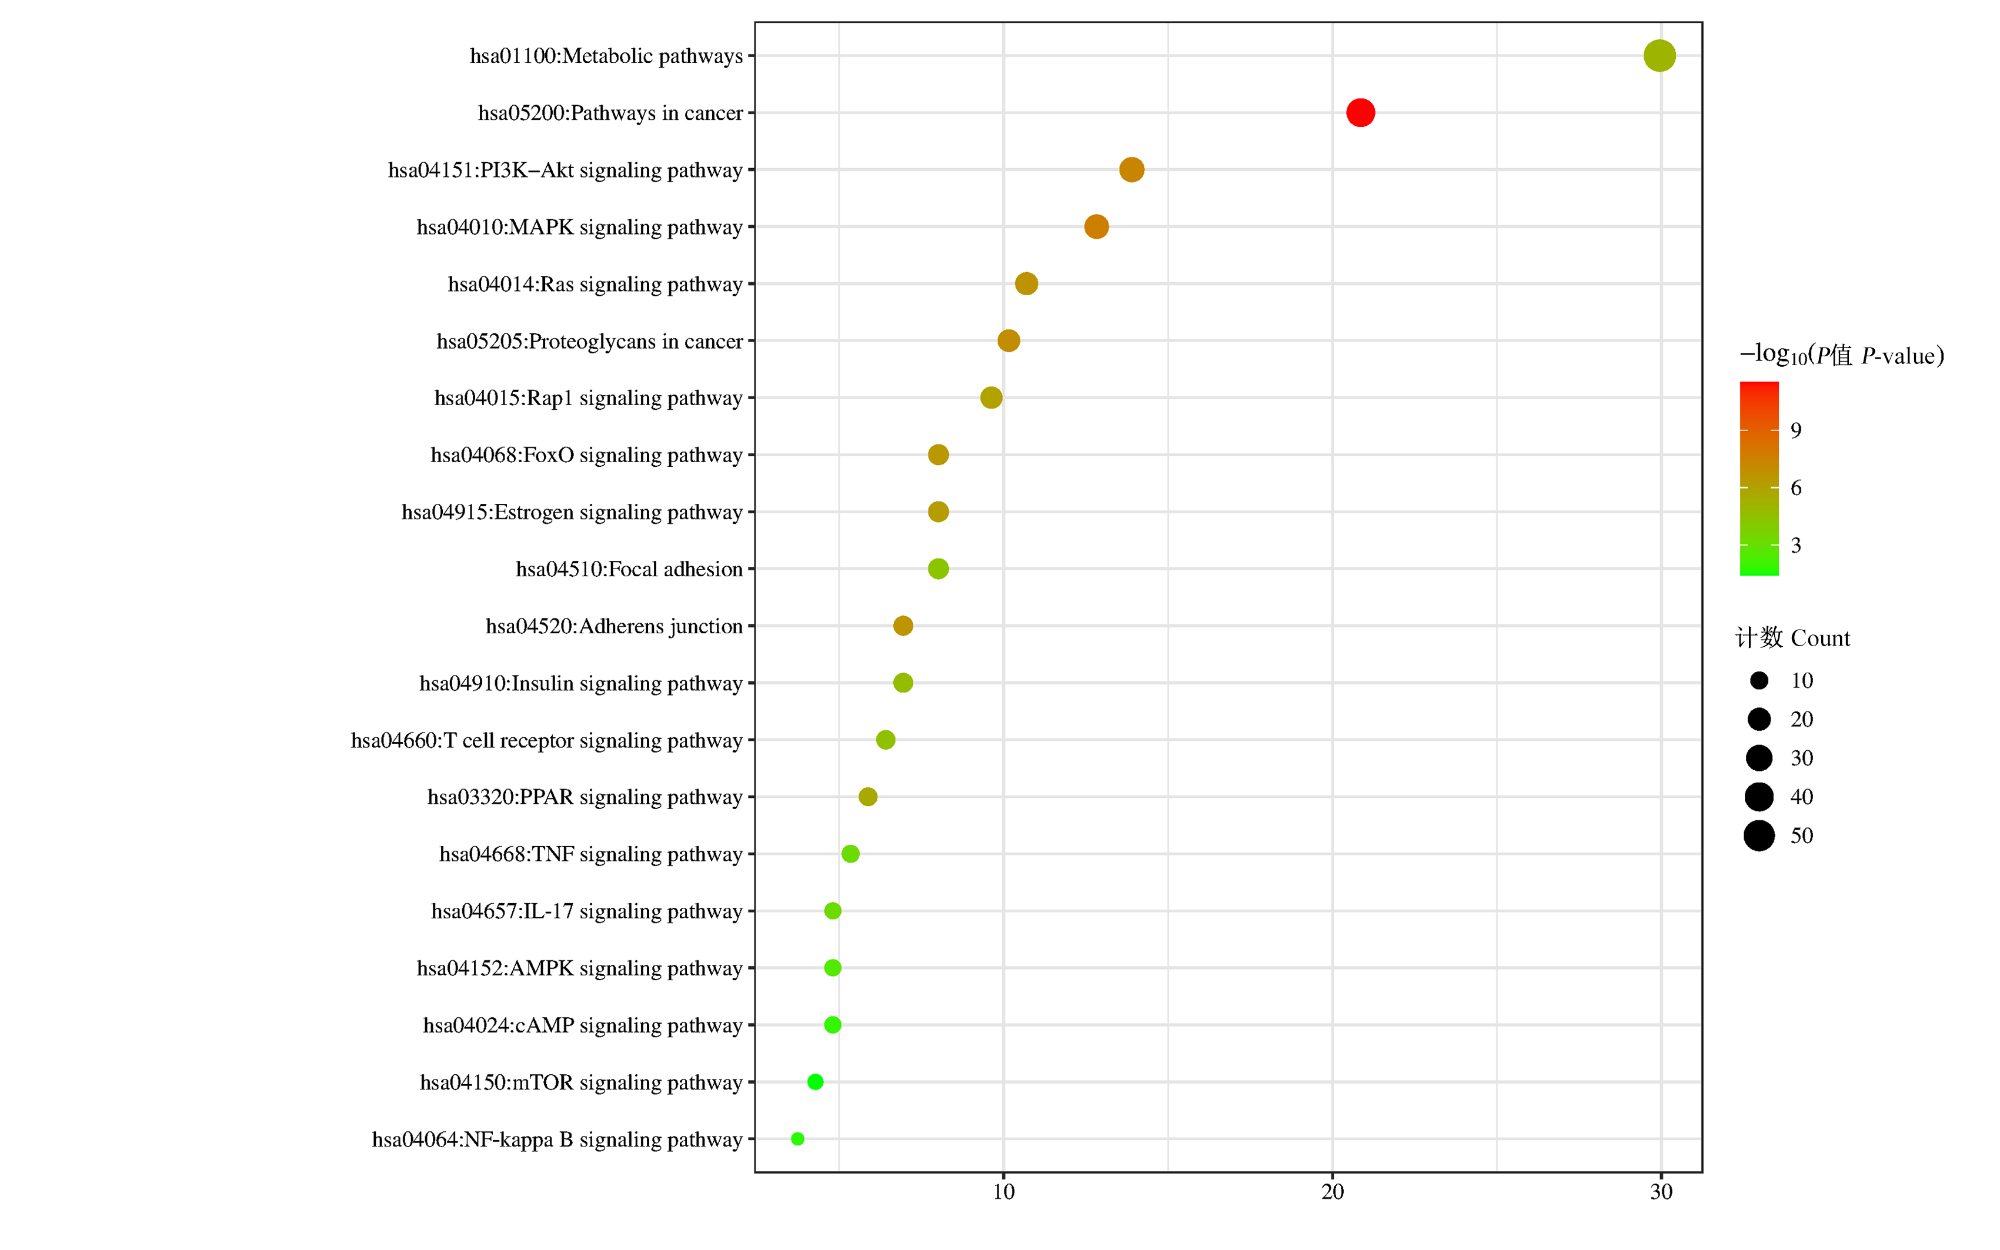
采用微生信在线平台(https://www.bioinformatics.com.cn)进行KEGG通路富集分析,综合考虑FDR、富集率与基因数量对通路进行排名,取前20个绘制气泡图,以富集率为横坐标、基因数量为气泡大小,同时标注显著性(P值或Q值)。如图4所示,KEGG通路共富集到95条信号通路,主要包括细胞黏附连接相关信号通路:黏附连接(adherens junction);转录因子相关信号通路:叉头转录因子O亚族蛋白(FoxO)信号通路(FoxO signaling pathway)、核因子-κB(NF-κB)信号通路(NF-κB signaling pathway)、雌激素信号通路(estrogen signaling pathway)、环磷酸腺苷(cAMP)信号通路(cAMP signaling pathway);Ras蛋白相关信号通路:Rap1信号通路(Rap1 signaling pathway);受体酪氨酸激酶相关信号通路:胰岛素信号通路(insulin signaling pathway)、T细胞受体信号通路(T cell receptor signaling pathway)、白细胞介素-17(IL-17)信号通路(IL-17 signaling pathway)、肿瘤坏死因子(TNF)信号通路(TNF signaling pathway);其他重要信号通路:磷脂酰肌醇3激酶(PI3K)-蛋白激酶B(Akt)信号通路(PI3K-Akt signaling pathway)、黏着斑(focal adhesion)、过氧化物酶体增殖物激活受体(PPAR)信号通路(PPAR signaling pathway)、腺苷酸活化蛋白激酶(AMPK)信号通路(AMPK signaling pathway)、雷帕霉素靶蛋白(mTOR)信号通路(mTOR signaling pathway)、代谢通路(metabolic pathways)。其中,直接与炎症相关的信号通路包括PI3K-Akt信号通路(26条,13.9%)、MAPK信号通路(24条,12.83%)、Ras信号通路(20条,10.7%)、T细胞受体信号通路(12条,6.42%)、TNF信号通路(10条,5.35%)、IL-17信号通路(9条,4.81%)和NF-κB信号通路(7条,3.74%);间接与炎症或潜在关联的信号通路包括FoxO信号通路(15条,8.02%)、黏着斑(15条,8.02%)、cAMP信号通路(9条,4.81%)、mTOR信号通路(8条,4.28%)。这些途径可能在牛磺酸抗乳腺炎中起关键作用,说明牛磺酸通过多靶点和途径发挥了抗炎作用。
图4 核心靶点的KEGG通路富集分析

Pathways in cancer:癌症通路;MAPK signaling pathway:丝裂原活化蛋白激酶信号通路;PI3K-Akt signaling pathway:磷脂酰肌醇3激酶-蛋白激酶B信号通路;Proteoglycans in cancer:癌症中的蛋白聚糖;Ras signaling pathway:Ras信号通路;Adherens junction:黏着连接;FoxO signaling pathway:叉头转录因子O亚族蛋白信号通路;Estrogen signaling pathway:雌激素信号通路;Rap1 signaling pathway:Rap1信号通路;PPAR signaling pathway :过氧化物酶体增殖物激活受体信号通路;Metabolic pathways:代谢通路;Insulin signaling pathway:胰岛素信号通路;T cell receptor signaling pathway:T细胞受体信号通路;Focal adhesion:焦点黏连;IL-17 signaling pathway:白细胞介素-17信号通路;TNF signaling pathway:肿瘤坏死因子信号通路;AMPK signaling pathway:腺苷酸活化蛋白激酶信号通路;cAMP signaling pathway:环磷酸腺苷信号通路;NF-kappa B signaling pathway:核因子-κB信号通路;mTOR signaling pathway:雷帕霉素靶蛋白信号通路。图5同 the same as Fig.5

Fig.4 KEGG pathway enrichment analysis of core targets

2.4 牛磺酸-奶牛乳腺炎症靶点-信号通路网络构建

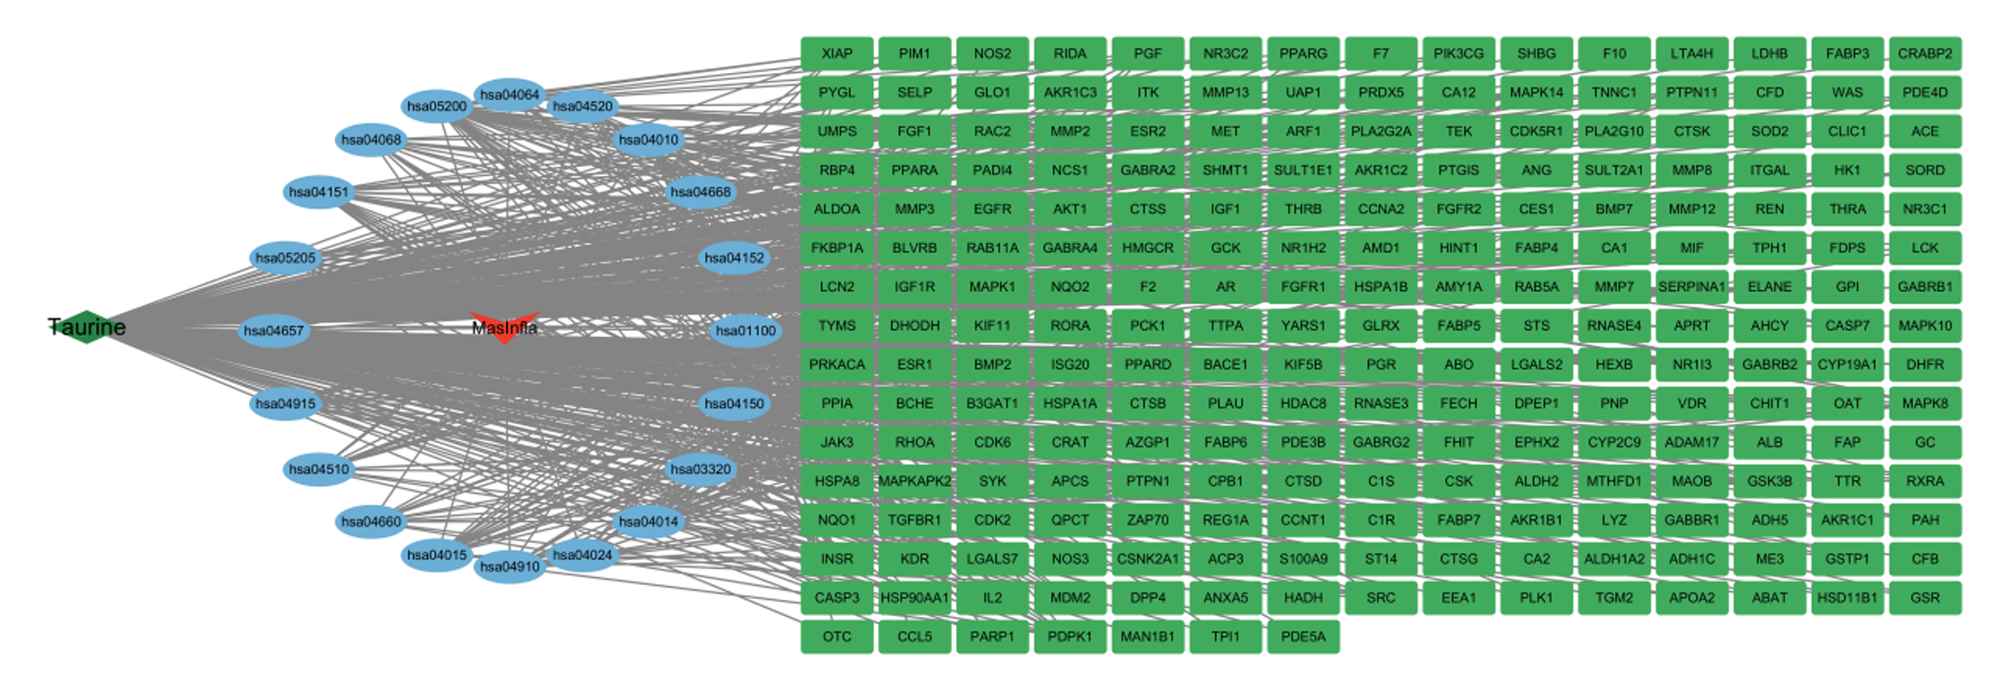
将KEGG通路富集结果与牛磺酸缓解奶牛乳腺炎症靶点进行整理,构建Network文件(包括牛磺酸与奶牛乳腺炎症的核心交集靶点,2.3中获得牛磺酸缓解奶牛乳腺炎症的20条主要通路)及Type文件,导入Cytoscape 3.10.1软件构建牛磺酸-奶牛乳腺炎症靶点-信号通路网络模型(图5),网络分析结果显示该网络节点数为254,网络边数为598。
图5 牛磺酸-奶牛乳腺炎症靶点-信号通路网络模型

Taurine:牛磺酸;Maslnfla:奶牛乳腺炎症 bovine mammary inflammation。

Fig.5 Taurine-bovine mammary inflammation-signal pathway network model

2.5 分子对接结果

牛磺酸-奶牛乳腺炎症核心靶点PPI互作网络中度值排名前9的核心靶点对应的pdb,其蛋白质结构解析度(Å)、对接结合能等具体信息见表3。通常,如果配体与靶蛋白的结合能小于0 kJ/mol,则配体与靶蛋白可以在自然状态下对接;如果配体与靶蛋白的结合能小于-20.92 kJ/mol[31,34],则配体与靶蛋白可以对接良好。牛磺酸与热休克蛋白90-α(HSP90AA1)对应的pdb(7S8Y)及与丝裂原活化蛋白激酶1(MAPK1)对应的pdb(3COI)的结合能小于-20.92 kJ/mol,表明配体与靶蛋白之间均稳定结合,分子对接图见图6
表3 牛磺酸与核心靶点的对接结果

Table 3 Docking results of taurine with core targets

核心靶点
Core targets
pdb 蛋白结构解析度
Protein structural
resolution
结合能
Binding energy/
(kJ/mol)
热休克蛋白90-α HSP90AA1 7S8Y 1.59 -28.74
RAC-α丝氨酸/苏氨酸蛋白激酶AKT1 1A07 2.20 -20.38
原癌基因酪氨酸蛋白激酶SRC 2ZUR 1.94 -13.00
非受体型蛋白酪氨酸磷酸酶11 PTPN11 5IBS 2.32 -15.06
丝裂原活化蛋白激酶8 MAPK8 1UKH 1.80 -13.10
胱天蛋白酶3 CASP3 1NME 1.60 -17.91
E3泛素-蛋白连接酶MDM2 3G03 1.80 -16.40
丝裂原活化蛋白激酶1 MAPK1 3COI 2.09 -21.88
表皮生长因子受体EGFR 3W2P 2.05 -16.86
图6 牛磺酸与乳腺炎症核心大蛋白靶点对应的pdb分子对接图

LYS:赖氨酸 lysine;GLU:谷氨酸 glutamic acid;ASN:天冬酰胺 asparagine;ARG:精氨酸 arginine;ASP:天冬氨酸 aspartic acid;THR:苏氨酸 threonine;GLY:甘氨酸 glycine。

Fig.6 Molecular docking diagram of taurine with core large protein targets

2.6 分子动力学模拟

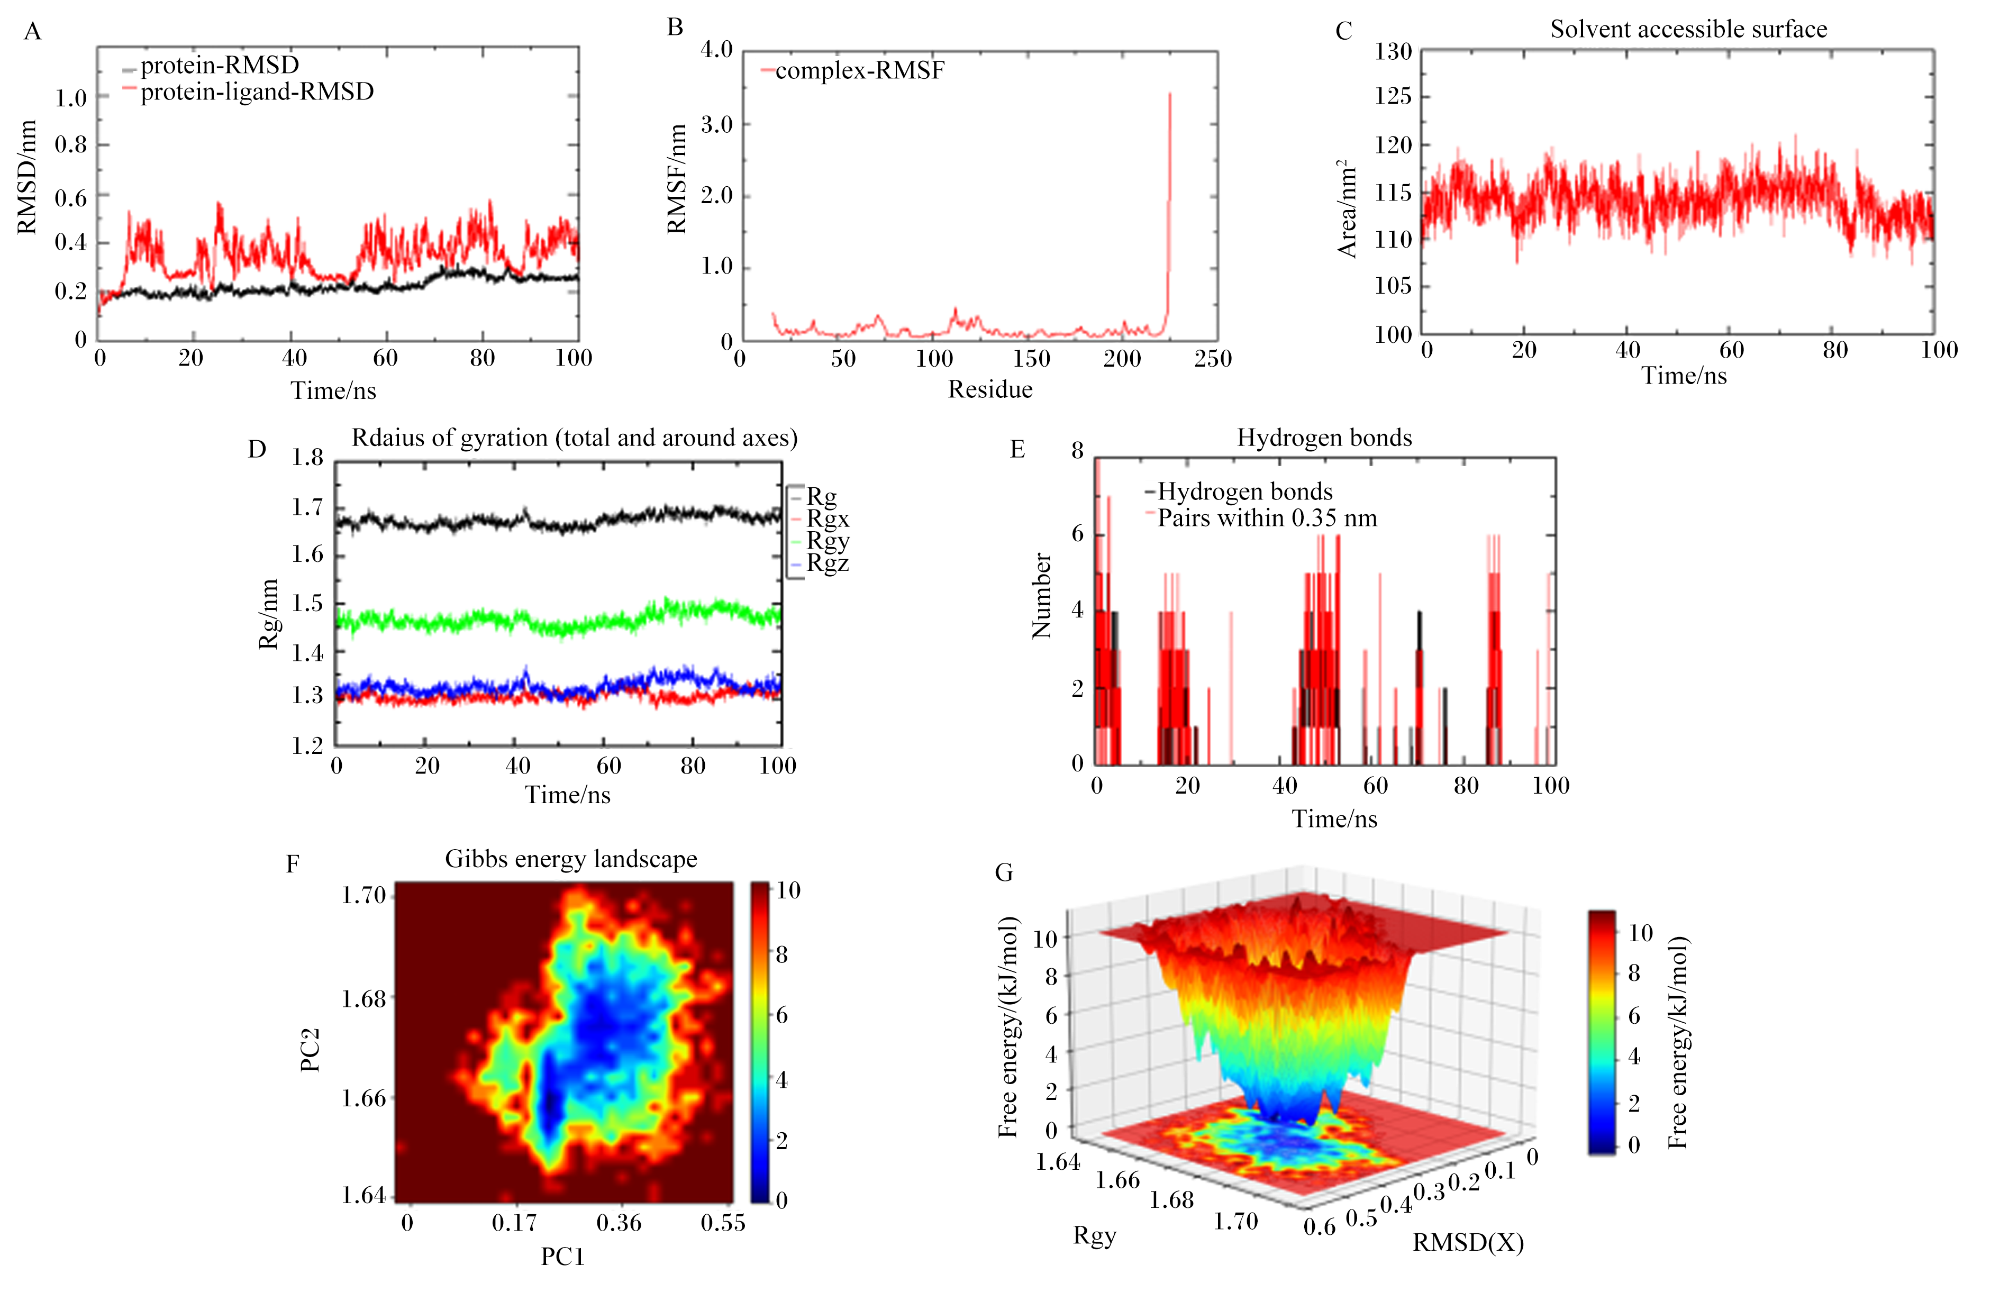
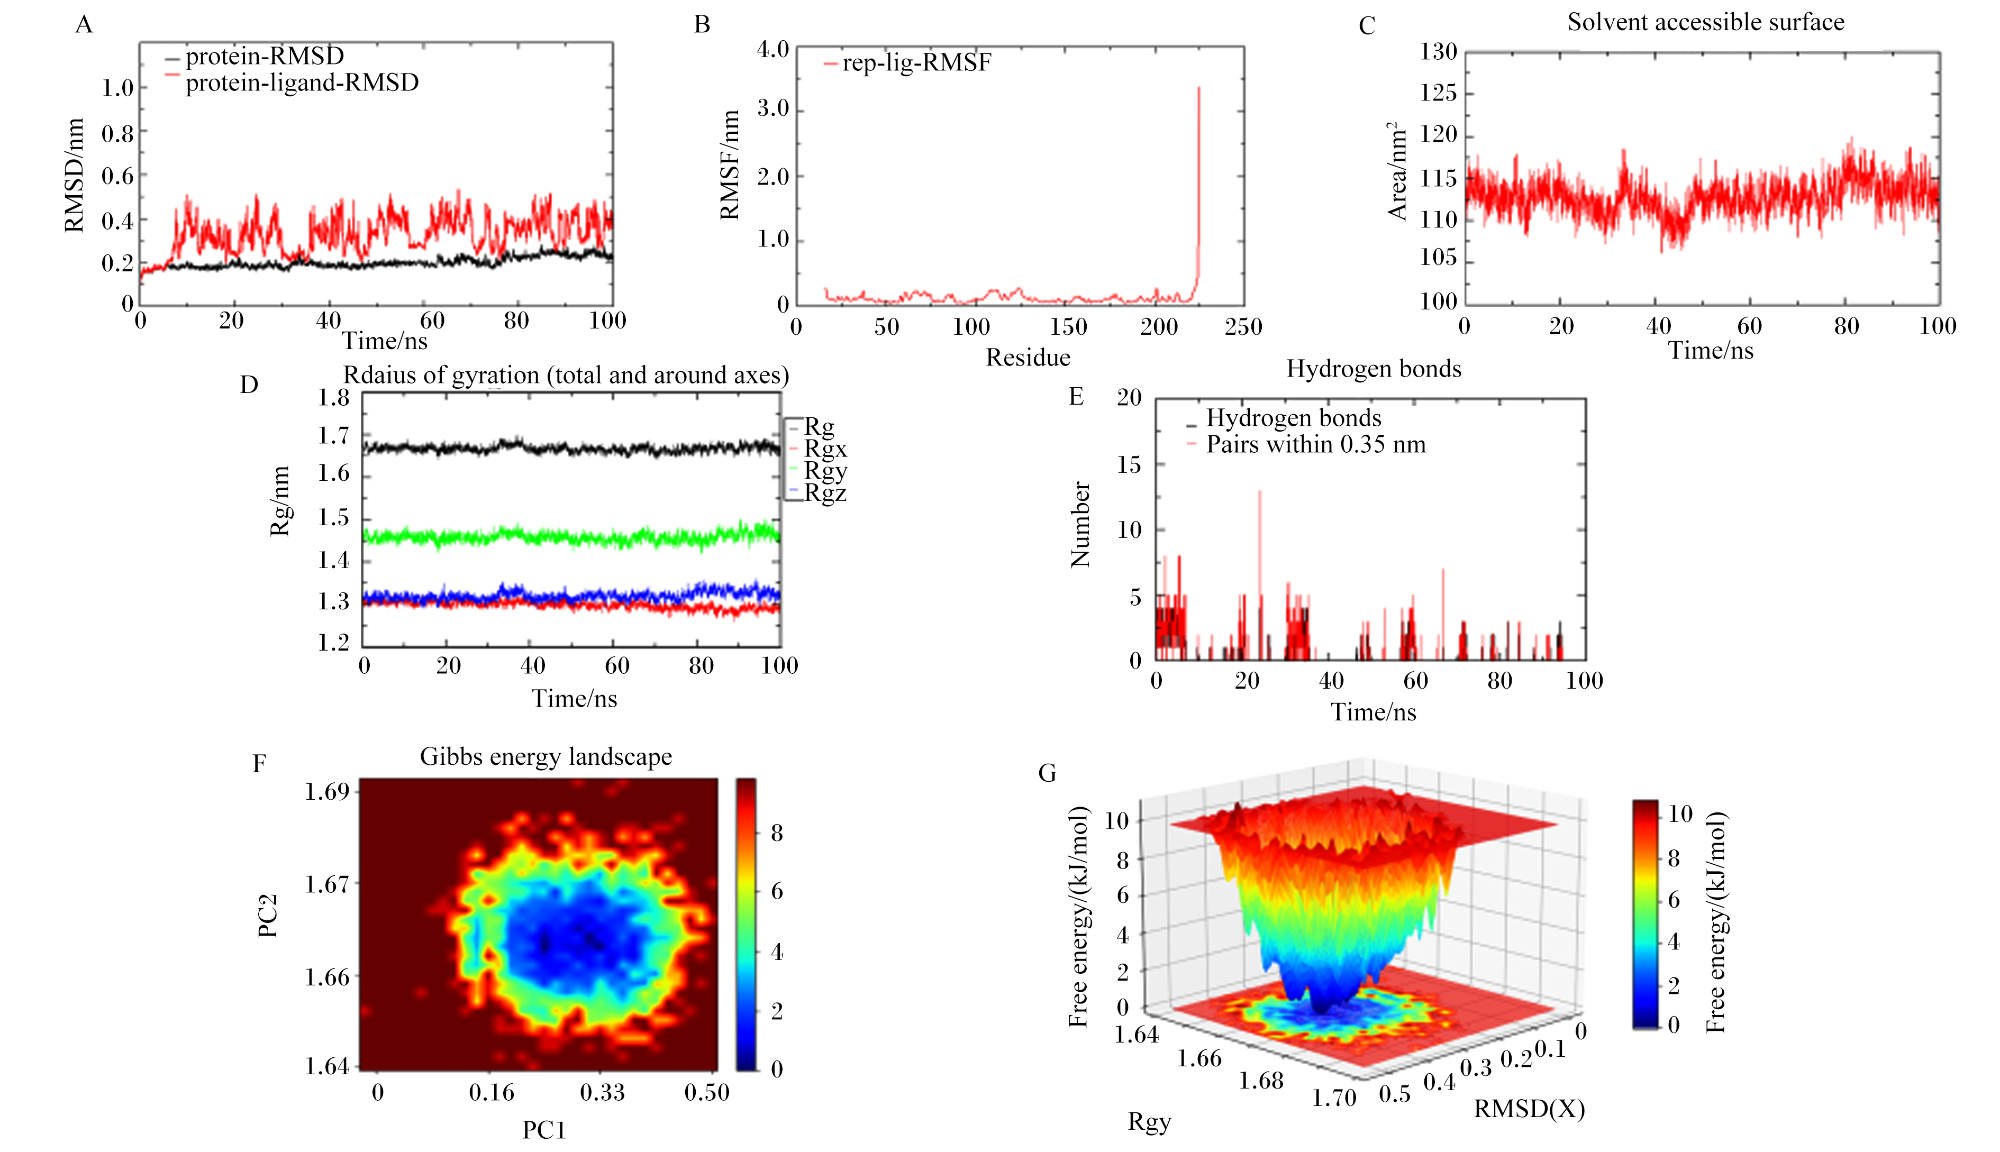
基于分子对接筛选出牛磺酸-奶牛乳腺炎症核心大蛋白的结合能复合物进行分子动力学模拟。如图7-A图7-B所示,从复合物(HSP90AA1对应的pdb-小分子配体牛磺酸)的RMSD表明复合物体系在90 ns后达到平衡,且RMSF可以表示蛋白质中氨基酸残基的柔性大小,RMSF<0.05 nm表明复合物结合稳定。复合物体系的Rg与SASA在运动过程中波动较小,表明蛋白质-小分子复合物整体结构的紧凑性和稳定性。如图7-C图7-D所示,小分子和靶蛋白复合物在运动过程中发生了构象变化。如图7-E所示,动力学模拟过程中的小分子与靶蛋白之间的氢键数量表明复合物具有良好的氢键相互作用。吉布斯自由能图谱,即自由能形貌图,基于主成分构建能量势能面,直观呈现构象簇的稳定性与转换路径。如图7-F图7-G所示,能量低谷(深蓝色区域)对应高概率构象簇,为体系稳定态(如蛋白-配体结合态)。同理,图8表明复合物(MAPK1对应的pdb-小分子配体牛磺酸)体系结合稳定,且复合物具有良好的氢键作用。因此,小分子与核心靶蛋白结合作用良好。
图7 HSP90AA1和牛磺酸随时间的分子动力学模拟分析

RMSD:均方根偏差 root mean square deviation;ns:纳秒 nanosecond;protein-RMSD:蛋白均方根偏差 protein root mean square deviation;protein-ligand-RMSD:蛋白-配体均方根偏差 protein-ligand root mean square deviation;nm:纳米 nanometer;RMSF:均方根涨落 root mean square fluctuation;complex-RMSF:复合物均方根涨落 complex root mean square fluctuation;residue:残基;Area:面积;Solvent accessible surface:溶剂可及表面积;time:时间;Rg:回转半径 radius of gyration;Radius of gyration (total and around axes):回转半径(总的和各个坐标轴的);Rgx:x轴的回转半径 radius of gyration of x axis;Rgy:y轴的回转半径 radius of gyration of y axis;Rgz:z轴的回转半径 radius of gyration of z axis;Hydrogen bonds:氢键;Pairs within 0.35 nm:0.35 nm内的原子对;Gibbs energy landscape:吉布斯自由能图谱;PC1:主成分1 principal component 1;PC2:主成分2 principal component 2;Free energy:自由能;RMSD(X):x轴上的均方根偏差 root mean square deviation of x axis。

A:HSP90AA1结合牛磺酸前后RMSD分析,平均RMSD为0.378,标准差为0.069;B:HSP90AA1-牛磺酸复合物的RMSF分析;C:HSP90AA1-牛磺酸复合物的SASA图分析;D:HSP90AA1-牛磺酸复合物的Rg分布;E:HSP90AA1-牛磺酸复合物分子内氢键随时间的变化;F:HSP90AA1-牛磺酸复合物的吉布斯自由能图谱2D图;G:HSP90AA1-牛磺酸复合物的吉布斯自由能图谱3D图。A: RMSD analysis before and after HSP90AA1 binding with taurine, with an average RMSD of 0.378 and a standard deviation of 0.069; B: RMSF analysis of HSP90AA1-taurine complex; C: SASA plot analysis of HSP90AA1-taurine complex; D: Rg distribution of HSP90AA1-taurine complex; E: time-dependent changes in intramolecular hydrogen bonds of HSP90AA1-taurine complex; F: 2D Gibbs free energy landscape of HSP90AA1-taurine complex; G: 3D Gibbs free energy landscape of HSP90AA1-taurine complex.

Fig.7 Molecular dynamics simulation analysis of HSP90AA1 and taurine over time

图8 MAPK1和牛磺酸随时间的分子动力学模拟分析

RMSD:均方根偏差 root mean square deviation;ns:纳秒 nanosecond;protein-RMSD:蛋白均方根偏差 protein root mean square deviation;protein-ligand-RMSD:蛋白-配体均方根偏差 protein-ligand root mean square deviation;nm:纳米 nanometer;RMSF:均方根涨落 root mean square fluctuation;rep-lig-RMSF:受体-配体-均方根涨落 root mean square fluctuation of receptor-ligand;residue:残基;Area:面积;Solvent accessible surface:溶剂可及表面积;Time:时间;Rg:回转半径 radius of gyration;Radius of gyration (total and around axes):回转半径(总的和各个坐标轴的);Rgx:x轴的回转半径 radius of gyration of x axis;Rgy:y轴的回转半径 radius of gyration of y axis;Rgz:z轴的回转半径 radius of gyration of z axis;Hydrogen bonds:氢键;Pairs within 0.35 nm:0.35 nm内的原子对;Gibbs energy landscape:吉布斯自由能图谱;PC1:主成分1 principal component 1;PC2:主成分2 principal component 2;Free energy:自由能;RMSD(X):x轴上的均方根偏差 root mean square deviation of x axis。

A:MAPK1结合牛磺酸前后的RMSD分析,平均RMSD为0.324,标准差为0.078;B:MAPK1牛磺酸复合物的RMSF分析;C:MAPK1-牛磺酸复合物的SASA图分析;D:MAPK1-牛磺酸复合物的Rg分布;E:MAPK1-牛磺酸复合物分子内氢键随时间的变化;F:MAPK1-牛磺酸复合物的吉布斯自由能图谱2D图;G:MAPK1-牛磺酸复合物的吉布斯自由能图谱3D图。A: RMSD analysis of MAPK1 before and after binding with taurine, with an average RMSD of 0.324 and a standard deviation of 0.078; B: RMSF analysis of MAPK1-taurine complex; C: SASA profile analysis of MAPK1-taurine complex; D: Rg distribution of MAPK1-taurine complex; E: time-dependent changes in intramolecular hydrogen bonds of MAPK1-taurine complex; F: 2D plot of Gibbs free energy landscape of MAPK1-taurine complex;G: 3D plot of Gibbs free energy landscape of MAPK1-taurine complex.

Fig.8 Molecular dynamics simulation analysis of MAPK1 and taurine over time

3 讨论

牛磺酸是一种功能性营养素,已被证明具有抗炎和抗氧化作用。近年来,牛磺酸在反刍动物上也有应用。Wang等[34]证实激活自噬可加速细胞内乳房链球菌的降解,降低细胞内的细菌载量,抑制NF-κB信号通路的过度激活,并减轻乳房链球菌感染所引起的炎症和损伤。Liu等[35]尝试硒和牛磺酸联合使用保护脂多糖诱导的乳腺炎性损伤,证实了通过上调PI3K/Akt/mTOR信号通路比单独使用其中任何一种物质的效果更好。牛磺酸通过调节Toll样受体(TLR)2下游的转化生长因子β激活激酶1(TAK1)的活性,抑制MAPK和NF-κB信号通路,从而减少巨噬细胞中趋化因子CXC配体2(CXCL2)的表达,以减少乳房链球菌感染时中性粒细胞的募集[36]。Li等[37]研究发现,牛磺酸预处理可减轻热应激引起的乳腺组织病理损伤和炎症反应,并增强乳腺上皮的完整性。研究表明,补充牛磺酸可改变主要与嘌呤代谢、脂质代谢及其他途径相关的代谢物,从而减轻奶牛乳腺上皮细胞的热应激[38]
关于牛磺酸的网络药理学的研究较少[39]。本文利用网络药理学、分子对接及分子动力学模拟技术开展牛磺酸与奶牛乳腺炎症相关核心靶蛋白的对接可能性及稳定性研究,进而揭示其减弱奶牛乳腺炎发生的作用机制。

3.1 牛磺酸缓解奶牛乳腺炎症的GO功能和KEGG通路富集分析

本研究筛选出牛磺酸缓解奶牛乳腺炎症的按度值排名靠前的核心靶点为HSP90AA1、RAC-α丝氨酸/苏氨酸蛋白激酶(AKT1)、原癌基因酪氨酸蛋白激酶(SRC)、非受体型蛋白酪氨酸磷酸酶11(PTPN11)、丝裂原活化蛋白激酶8(MAPK8)、表皮生长因子受体(EGFR)、胱天蛋白酶3(CASP3)、E3泛素-蛋白连接酶(MDM2)、MAPK1。AKT1是一种丝/苏氨酸激酶,不仅可以通过各种细胞外刺激激活PI3K/AKT信号通路介导炎症反应[40],还可以通过阻断TRL4和NF-κB途径缓解炎症[41]。本研究中的PPI互作网络分析发现SRC为牛磺酸缓解奶牛乳腺炎症的核心靶点,SRC可激活蛋白Ras,进一步激活细胞外调节蛋白激酶(ERK)和MAPK激酶(MEK),是细胞信号转导通路中的关键调控靶点,尤其在MAPK信号通路中发挥核心作用,活化的MAPK信号通路可磷酸化SRC,进而干扰细胞周期和细胞转化过程[31]。乳腺炎症交集靶点的BP、CC、MF的结果表明,BP主要涵盖信号转导、RNA聚合酶Ⅱ介导的转录正向调控、蛋白质水解、细胞凋亡过程的负向调控、细胞群体增殖的正向调控;MF主要涵盖蛋白质结合、ATP结合、酶结合、蛋白激酶结合、丝氨酸型内肽酶活性、蛋白激酶活性、信号受体结合。KEGG富集到的信号通路中,直接与炎症相关的信号通路包括PI3K-Akt信号通路、MAPK信号通路、Ras信号通路、T细胞受体信号通路、TNF信号通路、IL-17信号通路和NF-κB信号通路;间接与炎症或潜在关联的通路:FoxO信号通路、黏着斑、cAMP信号通路、mTOR信号通路,这些途径可能在牛磺酸缓解乳腺炎中起关键作用,说明牛磺酸通过多种靶点和途径发挥了抗炎作用。
研究揭示,MAPK信号通路作为细胞内核心信号转导枢纽,通过磷酸化级联激活转录因子,调控靶基因转录及细胞因子表达,介导炎症级联反应及免疫应答的病理生理进程。PI3K-Akt信号通路和MAPK信号通路与氧化应激密切相关。PI3K-AKT信号通路是一种经典的细胞内信号通路,可响应细胞外信号并促进新陈代谢,在细胞死亡、存活和增殖的调节中起关键作用[42-47]。IL-17信号通路作为炎症反应的关键上游调控枢纽,其激活可诱导下游促炎细胞因子TNF-α、白细胞介素-1β(IL-1β)和白细胞介素-6(IL-6)的转录表达,也可激活MAPK和NF-κB信号通路,进而推动炎症级联反应的放大与持续[48-51]。在乳腺炎的发病过程中,牛磺酸通过抑制PI3K-Akt信号通路,恢复FoxO转录因子的活性,从而促进促凋亡基因的表达和抗氧化酶的活性[34-35,52-53],具体包括抑制Akt磷酸化、解除FoxO的磷酸化抑制、调节细胞凋亡与再生平衡。牛磺酸通过激活FoxO信号通路,增强抗氧化酶活性,减轻氧化应激,从而缓解乳腺上皮细胞的损伤,具体包括上调抗氧化酶表达、减轻氧化应激损伤、调节能量代谢等[54]。牛磺酸通过调控癌症通路中的SELPLG和ITGB2等分子,减少免疫细胞浸润,从而缓解炎症反应,牛磺酸可增加调节性T细胞(Tregs)的比例,抑制促炎性免疫细胞(如中性粒细胞、巨噬细胞)的活化和浸润[55]

3.2 牛磺酸-奶牛乳腺炎症的核心蛋白对接复合物的动力学模拟

关于牛磺酸的网络药理学的研究甚少。陈晓阳等[39]基于网络药理学和分子对接探讨了牛磺酸治疗年龄相关性黄斑病变的机制,其中分子对接结果中小分子牛磺酸与核心蛋白的结合能均未小于-20.92 kJ/mol,通常认为结合自由能小于-20.92 kJ/mol代表有效成分与疾病靶点的亲和力较好[30,32]。本文筛选出牛磺酸-奶牛乳腺炎症核心大蛋白的结合能有2个最优复合物结合能小于-20.92 kJ/mol,并在完成分子对接后,开展了分子动力学模拟,且当模拟时长为100 ns时整个体系达到平衡[56-57]。模拟结果揭示牛磺酸与核心蛋白最优复合物中,HSP90AA1和MAPK1为奶牛乳腺炎症关键靶点。可视化结果显示,牛磺酸与HSP90AA1及MAPK1紧密结合,稳定性良好。本研究在完成网络药理学和分子对接后,首次利用分子动力学模拟技术验证了牛磺酸与奶牛乳腺炎症相关核心靶点蛋白对接结果的稳定性。

3.3 牛磺酸缓解奶牛乳腺炎症的潜力探讨

深入分析HSP90AA1和MAPK1这2个蛋白的上、下游基因及其作用,表明该结合具有重要意义。HSP90AA1是一种重要的分子伴侣蛋白,在细胞应激反应、蛋白质稳态和信号传导中发挥关键作用。其核心功能包括蛋白质折叠与稳定,协助新生或应激状态下蛋白质的正确折叠,防止其错误折叠和聚集;维持功能蛋白的活性构象,确保其稳定性和正常功能;细胞应激反应,在热应激、氧化应激或其他环境压力下,表达显著上调,保护细胞免受损伤;信号传导调控,参与调控关键信号通路(如MAPK、PI3K/AKT、NF-κB)[43-44,48],影响细胞增殖、分化、存活和炎症反应;其靶蛋白涵盖关键激酶、核受体、肿瘤相关蛋白、转录因子等。HSP90AA1的异常表达与癌症、神经退行性疾病和炎症性疾病等病理状态相关,因此其在疾病机制和治疗中具有重要研究价值。MAPK1作为MAPK信号通路核心成员,调控细胞生长、增殖、分化与存活。其通过磷酸化下游靶蛋白促进周期进程,调节抗凋亡蛋白增强细胞存活,核转位磷酸化转录因子调控基因表达[50-51,58]。MAPK1信号通路异常与癌症、炎症等疾病密切相关,是潜在治疗靶点。
牛磺酸通过多靶点机制(抗炎、抗氧化、免疫调节、屏障保护)显著缓解奶牛乳腺炎症[34-38],具有作为天然饲料添加剂的潜力。未来研究将利用加权基因共表达网络分析(WGCNA)方法[59]获得主要聚类以确定与疾病表型高度相关的基因模块,并为后续机器学习筛选及外部数据集验证提供理论依据。开展体外细胞试验并评估牛磺酸对乳腺上皮细胞的保护作用,同时开展大动物体内补饲牛磺酸/过瘤胃牛磺酸对奶牛乳腺炎防治的功效验证,本部分研究融合系统生物学、机器学习算法及深度挖掘方法,系统剖析基因表达网络、蛋白质互作关系、信号通路调控机制及整体表型变化规律。

4 结论

通过网络药理学、分子对接及分子动力学模拟筛选了牛磺酸缓解奶牛乳腺炎的主要作用靶点,其可干预HSP90AA1及MAPK相关的通路,抑制促炎因子表达,为牛磺酸作为抗炎功能饲料添加剂的应用提供了理论依据。
[1]
COSTA A, BOVENHUIS H, EGGER-DANNER C, et al. Mastitis has a cumulative and lasting effect on milk yield and lactose content in dairy cows[J]. Journal of Dairy Science, 2025, 108(1):635-650.

DOI

[2]
PAKRASHI A, RYAN C, GUÉRET C, et al. Early detection of subclinical mastitis in lactating dairy cows using cow-level features[J]. Journal of Dairy Science, 2023, 106(7):4978-4990.

DOI PMID

[3]
PUERTO M A, SHEPLEY E, CUE R I, et al. The hidden cost of disease:Ⅰ.Impact of the first incidence of mastitis on production and economic indicators of primiparous dairy cows[J]. Journal of Dairy Science, 2021, 104(7):7932-7943.

DOI

[4]
SINGH A, SOMULA H, WIELAND M. A retrospective cohort study investigating the association of postcalving intramammary infection and milk yield,somatic cell count,clinical mastitis,and culling risk in first-lactation dairy cows[J]. Journal of Dairy Science, 2025, 108(4):4234-4247.

DOI

[5]
TIAN H, ZHOU X J, WANG H, et al. The prediction of clinical mastitis in dairy cows based on milk yield,rumination time,and milk electrical conductivity using machine learning algorithms[J]. Animals, 2024, 14(3):427.

DOI

[6]
ZALEWSKA M, BRZOZOWSKA P, RZEWUSKA M, et al. The quality and technological parameters of milk obtained from dairy cows with subclinical mastitis[J]. Journal of Dairy Science, 2025, 108(2):1285-1300.

DOI PMID

[7]
HUXTABLE R J. Physiological actions of taurine[J]. Physiology Reviews, 1992, 72(1):101-163.

DOI

[8]
GARCÍA-AYUSO D, DI PIERDOMENICO J, MARTÍNEZ-VACAS A, et al. Taurine:a promising nutraceutic in the prevention of retinal degeneration[J]. Neural Regeneration Research, 2024, 19(3):606-610.

DOI

[9]
MA Y, ZHANG Y, LI R, et al. Mechanism of taurine reducing inflammation and organ injury in sepsis mice[J]. Cellular Immunology, 2022, 375:104503.

DOI

[10]
GUIZONI D M, VETTORAZZI J F, CARNEIRO E M, et al. Modulation of endothelium-derived nitric oxide production and activity by taurine and taurine-conjugated bile acids[J]. Nitric Oxide, 2020, 94:48-53.

DOI PMID

[11]
QARADAKHI T, GADANEC L K, MCSWEENEY K R, et al. The anti-inflammatory effect of taurine on cardiovascular disease[J]. Nutrients, 2020, 12(9):2847.

DOI

[12]
SUN Q Q, WANG B, LI Y S, et al. Taurine supplementation lowers blood pressure and improves vascular function in prehypertension:randomized,double-blind,placebo-controlled study[J]. Hypertension, 2016, 67(3):541-549.

DOI

[13]
SCHAFFER S, KIM H W. Effects and mechanisms of taurine as a therapeutic agent[J]. Biomolecules & Therapeutics, 2018, 26(3):225-241.

[14]
DOMOTO T, KISE K, OYAMA Y, et al. Association of taurine intake with changes in physical fitness among community-dwelling middle-aged and older Japanese adults:an 8-year longitudinal study[J]. Frontiers in Nutrition, 2024, 11:1337738.

DOI

[15]
何天培, 周毓平, 王玉江. 牛磺酸对肉仔鸡生产性能的影响及其作用机制的研究[J]. 吉林农业大学学报, 1995, 17(2):68-73.

HE T P, ZHOU Y P, WANG Y J. Effect of taurine on broiler performance thyroid hormones and immunity[J]. Journal of Jilin Agricultural University, 1995, 17(2):68-73. (in Chinese)

[16]
文超越. 氧化应激对猪肌肉组织的损伤以及牛磺酸的缓解作用机制[D]. 硕士学位论文. 长沙: 湖南师范大学, 2019.

WEN C Y. The mechanism of taurine alleviate muscle injury induced by oxidative stress in pig[D]. Master’s Thesis. Changsha: Hunan Normal University, 2019. (in Chinese)

[17]
徐苏微, 邢通, 李蛟龙, 等. 牛磺酸对肉鸡肉品质、糖酵解潜力及肌纤维特性的影响[J]. 南京农业大学学报, 2020, 43(5):935-941.

XU S W, XING T, LI J L, et al. Effects of dietary taurine supplementation on meat quality,glycolytic potential and muscle fiber characteristics in broiler chickens[J]. Journal of Nanjing Agricultural University, 2020, 43(5):935-941. (in Chinese)

[18]
段丽婷, 周连丽, 雷娟红, 等. 牛磺酸研究现状及抗脂质代谢紊乱研究进展[J]. 中国现代应用药学, 2025, 42(3):481-490.

DUAN L T, ZHOU L L, LEI J H, et al. Research status of taurine and research progress of anti-lipid metabolism disorder[J]. Chinese Journal of Modern Applied Pharmacy, 2025, 42(3):481-490. (in Chinese)

[19]
柳茜, 梁萌青, 郑珂珂, 等. 牛磺酸及相关氨基酸对大菱鲆幼鱼生长性能及TauT mRNA表达的影响[J]. 水生生物学报, 2017, 41(1):165-173.

LIU X, LIANG M Q, ZHENG K K, et al. Effects of dietary taurine and related amino acids on growth performance and taurine transporter (Taut) mRNA expression of juvenile turbot (Scophthalmus maximus L.)[J]. Acta Hydrobiologica Sinica, 2017, 41(1):165-173. (in Chinese)

[20]
罗莉, 王琳, 龙勇, 等. 牛磺酸对草鱼生长效应研究[J]. 饲料工业, 2005, 26(12):22-24.

LUO L, WANG L, LONG Y, et al. Study on effects of taurine on growth performance of grass carp[J]. Feed Industry, 2005, 26(12):22-24. (in Chinese)

[21]
钱嘉豪. 高糖饲料添加牛磺酸对不同食性鱼类IGF-1R SUMOylation修饰和糖代谢的影响研究[D]. 硕士学位论文. 湛江: 广东海洋大学, 2021.

QIAN J H. Effects of supplementing taurine to a high carbohydrate dietary on IGF-1R SUMOylation and glucose metabolism in hybrid grouper (♀Epinephelus fuscoguttatus× ♂E. lanceolatus),Nile tilapia (Oreochromis niloticus) and grass carp (Ctenopharyngodon idella)[D]. Master’s Thesis. Zhenjiang: Guangdong Ocean University, 2021. (in Chinese)

[22]
BALIOU S, ADAMAKI M, IOANNOU P, et al. Protective role of taurine against oxidative stress (review)[J]. Molecular Medicine Reports, 2021, 24(2):605.

DOI

[23]
LEVY M, THAISS C A, ZEEVI D, et al. Microbiota-modulated metabolites shape the intestinal microenvironment by regulating NLRP6 inflammasome signaling[J]. Cell, 2015, 163(6):1428-1443.

DOI PMID

[24]
STACY A, ANDRADE-OLIVEIRA V, MCCULLOCH J A, et al. Infection trains the host for microbiota-enhanced resistance to pathogens[J]. Cell, 2021, 184(3):615-627.e17.

DOI PMID

[25]
CAO T Y, ZHANG W Y, WANG Q, et al. Cancer SLC6A6-mediated taurine uptake transactivates immune checkpoint genes and induces exhaustion in CD8+ T cells[J]. Cell, 2024, 187(9):2288-2304.e27.

DOI

[26]
MCGAUNN J, BAUR J A. Taurine linked with healthy aging[J]. Science, 2023, 380(6649):1010-1011.

DOI PMID

[27]
SINGH P, GOLLAPALLI K, MANGIOLA S, et al. Taurine deficiency as a driver of aging[J]. Science, 2023, 380(6649):eabn9257.

[28]
WEI W, LYU X C, MARKHARD A L, et al. PTER is a N-acetyltaurine hydrolase that regulates feeding and obesity[J]. Nature, 2024, 633(8028):182-188.

DOI

[29]
解静, 高杉, 李琳, 等. 网络药理学在中药领域中的研究进展与应用策略[J]. 中草药, 2019, 50(10):2257-2265.

XIE J, GAO S, LI L, et al. Research progress and application strategy on network pharmacology in Chinese materia medica[J]. Chinese Traditional and Herbal Drugs, 2019, 50(10):2257-2265. (in Chinese)

[30]
杨嘉睿, 高家瑞, 赵梓轩, 等. 基于网络药理学和分子对接分析金银花在奶牛生产中的抗炎作用及机制[J]. 动物营养学报, 2023, 35(5):3104-3118.

DOI

YANG J R, GAO J R, ZHAO Z X, et al. Anti-inflammatory effect and mechanism of Lonicerae japonicae Flos in dairy cow production based on network pharmacology and molecular docking[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3104-3118. (in Chinese)

[31]
姚宏, 施寿荣, 赵茹茜. 基于网络药理学和分子对接探究绿原酸缓解鸡肠道炎症的作用机制[J]. 中国农业科学, 2025, 58(3):600-616.

DOI

YAO H, SHI S R, ZHAO R Q. The potential and mechanism of chlorogenic acid to alleviate intestinal inflammation in chickens based on network pharmacology and molecular docking[J]. Scientia Agricultura Sinica, 2025, 58(3):600-616. (in Chinese)

DOI

[32]
鲍胡杨, 薄欣宇, 刘金耀, 等. 基于网络药理学和分子对接技术探索黄芪提高家兔抗氧化应激的作用机制[J]. 动物营养学报, 2024, 36(5):3247-3261.

DOI

BAO H Y, BO X Y, LIU J Y, et al. Mechanism of action of milkvetch root in enhancing anti-oxidative stress in rabbits based on network pharmacology and molecular docking technology[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3247-3261. (in Chinese)

DOI

[33]
刁其玉, 张春桃, 屠焰. 网络药理学在动物营养与健康养殖中的研究进展[J]. 饲料工业, 2025, 46(11):1-9.

DIAO Q Y, ZHANG C T, TU Y. Research advances in network pharmacology applications for animal nutrition and health-oriented husbandry[J]. Feed Industry, 2025, 46(11):1-9. (in Chinese)

[34]
WANG Z L, LAN R G, XU Y Y, et al. Taurine alleviates Streptococcus uberis-induced inflammation by activating autophagy in mammary epithelial cells[J]. Frontiers in Immunology, 2021, 12:631113.

DOI

[35]
LIU D D, LIN J S, HE W M, et al. Selenium and taurine combination is better than alone in protecting lipopolysaccharide-induced mammary inflammatory lesions via activating PI3K/Akt/mTOR signaling pathway by scavenging intracellular ROS[J]. Oxidative Medicine and Cellular Longevity, 2021, 2021(1):5048375.

DOI

[36]
LI M, WANG Z L, FU S D, et al. Taurine reduction of injury from neutrophil infiltration ameliorates Streptococcus uberis-induced mastitis[J]. International Immunopharmacology, 2023, 124(Pt B):111028.

[37]
LI H, CHEN H J, ZHANG S B, et al. Taurine alleviates heat stress-induced mammary inflammation and impairment of mammary epithelial integrity via the ERK1/2-MLCK signaling pathway[J]. Journal of Thermal Biology, 2023, 116:103587.

DOI

[38]
LIU F F, LIANG L, LUO Z G, et al. Effects of taurine on metabolomics of bovine mammary epithelial cells under high temperature conditions[J]. Frontiers in Veterinary Science, 2024, 11:1393276.

DOI

[39]
陈晓阳, 王子祎, 谢亚昊, 等. 基于网络药理学和分子对接探讨牛磺酸治疗年龄相关性黄斑病变的机制[J]. 神经药理学报, 2024, 14(6):1-12.

CHEN X Y, WANG Z Y, XIE Y H, et al. To investigate the mechanism of taurine for age-related macular degeneration based on network pharmacology and molecular docking[J]. Acta Neuropharmacologica, 2024, 14(6):1-12. (in Chinese)

[40]
YOU X L, ZHAO M L, LIU Y R, et al. Hypericum perforatum L. protects against renal function decline in ovariectomy rat model by regulating expressions of NOS3 and AKT1 in AGE-RAGE pathway[J]. Phytomedicine, 2024, 123:155160.

DOI

[41]
WANG Y F, LIU M F, HUANG N, et al. Quercetin-targeted AKTl regulates the Raf/MEK/ERK signaling pathway to protect against doxorubicin-induced nephropathy in mice[J]. Tissue & Cell, 2023, 85:102229.

[42]
ZHANG W J, YANG H F, ZHU L Q, et al. Role of EGFR/ErbB2 and PI3K/AKT/e-NOS in Lycium barbarum polysaccharides ameliorating endothelial dysfunction induced by oxidative stress[J]. The American Journal of Chinese Medicine, 2019, 47(7):1523-1539.

DOI

[43]
LEE K I, SU C C, FANG K M, et al. Ultrafine silicon dioxide nanoparticles cause lung epithelial cells apoptosis via oxidative stress-activated PI3K/Akt-mediated mitochondria- and endoplasmic reticulum stress-dependent signaling pathways[J]. Scientific Reports, 2020, 10(1):9928.

DOI

[44]
SHEN A L, WU M Z, ALI F, et al. Based on network pharmacology,gastrodin attenuates hypertension-induced vascular smooth muscle cell proliferation and PI3K/AKT pathway activation[J]. Scientific Reports, 2023, 13(1):12140.

DOI

[45]
BURKE J E. Structural basis for regulation of phosphoinositide kinases and their involvement in human disease[J]. Molecular Cell, 2018, 71(5):653-673.

DOI PMID

[46]
MANNING B D, TOKER A. AKT/PKB signaling:navigating the network[J]. Cell, 2017, 169(3):381-405.

DOI

[47]
MCNAMARA C R, DEGTEREV A. Small-molecule inhibitors of the PI3K signaling network[J]. Future Medicinal Chemistry, 2011, 3(5):549-565.

DOI PMID

[48]
CHANG S H, DONG C. Signaling of interleukin-17 family cytokines in immunity and inflammation[J]. Cellular Signalling, 2011, 23(7):1069-1075.

DOI PMID

[49]
张进, 武慧宁, 赵林露, 等. 基于网络药理学和分子对接探究罗汉果提取物抗炎作用机制[J]. 动物营养学报, 2025, 37(2):1325-1339.

DOI

ZHANG J, WU H N, ZHAO L L, et al. To explore anti-inflammatory mechanism of Momordica grosvenori extract based on network pharmacology and molecular docking[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):1325-1339. (in Chinese)

DOI

[50]
JIN W, DONG C. IL-17 cytokines in immunity and inflammation[J]. Emerging Microbes & Infections, 2013, 2(9):e60.

[51]
PEDERSEN J, COSKUN M, SOENDERGAARD C, et al. Inflammatory pathways of importance for management of inflammatory bowel disease[J]. World Journal of Gastroenterology, 2014, 20(1):64-77.

DOI PMID

[52]
王正磊. 牛磺酸通过激活乳腺上皮细胞自噬缓解乳房链球菌感染的机制[D]. 硕士学位论文. 南京: 南京农业大学, 2019.

WANG Z L. The mechanism of taurine activates mammary epithelial cells autophagy and alleviates the infection of Streptococcus uberis[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2019. (in Chinese)

[53]
蓝日国. 牛磺酸通过AMPK-mTOR调节能量代谢缓解乳房链球菌感染诱导的炎症[D]. 硕士学位论文. 南京: 南京农业大学, 2021.

LAN R G. Taurine regulates energy metabolism through AMPK-mTOR to alleviate Streptococcus uberis infection-induced inflammation[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2021. (in Chinese)

[54]
黎明. 牛磺酸对奶牛乳腺健康及乳房链球菌型乳腺炎的调控作用[D]. 博士学位论文. 南京: 南京农业大学, 2022.

LI M. Regulation of taurine on mammary gland health of dairy cows and Streptococcus uberis-induced mastitis[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2022. (in Chinese)

[55]
MIAO J F, ZHANG J Q, ZHENG L H, et al. Taurine attenuates Streptococcus uberis-induced mastitis in rats by increasing T regulatory cells[J]. Amino Acids, 2012, 42(6):2417-2428.

DOI

[56]
SABZIAN-MOLAEI F, HOSSEINI S, ALIPOUR A, et al. Urtica dioica agglutinin (UDA) as a potential candidate for inhibition of SARS-CoV-2 omicron variants:in silico prediction and experimental validation[J]. Phytomedicine, 2023, 111:154648.

DOI

[57]
ANDERSON S D, TABASSUM A, YEON J K, et al. In silico prediction of ARB resistance:a first step in creating personalized ARB therapy[J]. PLoS Computational Biology, 2020, 16(11):e1007719.

DOI

[58]
HUANG Z, WANG S S, WEN Y X, et al. Identifying potential active ingredients from pomegranate in treating anemia:CPA3 and SOX4 are key proteins[J]. International Journal of Biological Macromolecules, 2025, 284(Pt 1):138124.

DOI

[59]
CHEN G Q, GOU B Y, DU Y H, et al. Predicting the molecular mechanism of ginger targeting PRMT1/BTG2 axis to inhibit gastric cancer based on WGCNA and machine algorithms[J]. Phytomedicine, 2025, 143:156892.

DOI

Outlines

/