RESEARCH PAPER

Effects of Replacing Soybean Meal with Eucommia ulmoides Seed Meal on Performance, Nutrient Utilization and Intestinal Microflora of Laying Hens in Late Laying Period

  • HE Xiaoxuan , 1 ,
  • WANG Lijun 1 ,
  • MA Hui 1 ,
  • WANG Leiqing 1 ,
  • WANG Manding 2 ,
  • MU Yongpan 3 ,
  • FENG Jia 1 ,
  • MIN Yu’na , 1, *
Expand
  • 1 College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
  • 2 Xianyang Animal Husbandry Technology Extension Station, Xianyang 712100, China
  • 3 Xingping Animal Disease Prevention and Control Center, Xingping 713100, China
*professor, E-mail:

Received date: 2025-09-25

  Online published: 2026-04-14

Abstract

This experiment was conducted to investigate the effects of replacing soybean meal with Eucommia ulmoides seed meal on performance, nutrient utilization and intestinal microflora of laying hens in late laying period. A total of 450 fifty-week-old Hy-Line brown laying hens with good health condition and similar initial body weight were randomly allocated into 5 groups with 6 replicates per group and 15 hens per replicate. Hens in the control group (CON group) were fed a basal diet, and those in the experimental groups were fed the experimental diets in which 10% (EUSM10 group), 20% (EUSM20 group), 30% (EUSM30 group) and 40% (EUSM40 group) of soybean meal in the basal diet were replaced by Eucommia ulmoides seed meal on an equal protein basis, respectively. The experiment lasted for 13 weeks including a 1-week adaptation period and a 12-week experimental period. The results showed as follows: 1) compared with the CON group, the average daily feed intake, average egg weight and feed to egg ratio in the experimental groups were significantly decreased from week 1 to 12 (P<0.05); the laying rate in the EUSM10 group had no significant change (P>0.05), while it was significantly decreased in the EUSM20, EUSM30 and EUSM40 groups (P<0.05). 2) Compared with the CON group, the apparent utilization of dry matter in the experimental groups was significantly increased (P<0.05); the apparent utilization of crude protein in the EUSM40 group was significantly decreased (P<0.05), while the apparent utilization of ether extract in the EUSM40 group was significantly increased (P<0.05); the activities of lipase and trypsin in duodenum in the EUSM10 group were significantly increased (P<0.05), while the activities of lipase in jejunum and amylase in ileum in the EUSM10 group were significantly decreased (P<0.05). 3) Compared with the CON group, the cecal microbial species abundance in the experimental groups was decreased; the relative abundance of Desulfobacterota in cecum in the EUSM10 and EUSM20 groups had no significant change (P>0.05), while it was significantly increased in the EUSM30 and EUSM40 groups (P<0.05); the relative abundances of Rikenellaceae_RC9_gut_group and UCG-004 in cecum in the EUSM20 group were significantly increased (P<0.05); the relative abundance of Christensenellaceae_R-7_group in cecum in the EUSM10 group was significantly increased (P<0.05). In conclusion, dietary Eucommia ulmoides seed meal replacing soybean meal can improve the apparent utilization of dry matter of laying hens in late laying period, and low-level replacement can increase the relative abundance of some beneficial bacteria in intestine. Under the conditions of this experiment, the appropriate proportion of dietary Eucommia ulmoides seed meal replacing soybean meal on an equal protein basis is 10%.

Cite this article

HE Xiaoxuan , WANG Lijun , MA Hui , WANG Leiqing , WANG Manding , MU Yongpan , FENG Jia , MIN Yu’na . Effects of Replacing Soybean Meal with Eucommia ulmoides Seed Meal on Performance, Nutrient Utilization and Intestinal Microflora of Laying Hens in Late Laying Period[J]. Chinese Journal of Animal Nutrition, 2026 , 38(4) : 2636 -2650 . DOI: 10.12418/CJAN2026.212

中国是全球最大的鸡蛋生产国与消费国,2024年蛋鸡存栏量达12.60亿只。在蛋鸡养殖总成本中,饲粮支出占比高达60%~70%,而蛋白质饲料原料是其主要构成部分,占比超过50%。因此,蛋白质饲料成本是决定蛋鸡养殖经济效益的关键因素。目前,我国蛋鸡饲粮普遍采用“玉米-豆粕”型配方体系,豆粕添加量达到21%~31%[1],这种结构高度依赖进口大豆加工产物。随着豆粕价格剧烈波动,亟需建立多元化蛋白质供给体系,开发新型饲料资源以缓解对进口大豆的依赖。
杜仲籽由种壳和籽仁组成,植物学上称为翅果,富含油脂、蛋白质及环烯醚萜苷等多种天然活性成分[2]。马蓁等[3]研究表明,杜仲籽粕的营养全面且丰富,具有高蛋白质、低脂肪、髙钾、低钠的特性。此外,杜仲籽粕富含环烯醚萜类物质(如桃叶珊瑚苷等),并含有总黄酮、绿原酸等次生代谢产物。研究表明,绿原酸可通过抑制炎症反应、改善抗氧化能力及增加肠道益生菌相对丰度,缓解家禽急性热应激造成的肠道损伤[4];杜仲籽粕中的黄酮类物质能够发挥抗菌以及抗氧化作用,可作为潜在的抗生素替代品[5]。上述特性使其不仅可作为蛋白质替代源,还可通过功能活性物质调节蛋鸡肠道菌群平衡。然而,杜仲籽粕在蛋鸡生产中的应用研究仍较为缺乏。因此,本试验通过研究不同比例杜仲籽粕替代豆粕对产蛋后期蛋鸡生产性能、养分利用及肠道微生物区系的影响,确定其适宜替代水平,为杜仲籽粕在蛋鸡饲粮中的科学应用提供理论依据。

1 材料与方法

1.1 试验材料

试验所用杜仲籽粕为市售产品,其营养成分及抗营养因子含量如表1所示,氨基酸含量如表2所示。
表1 杜仲籽粕营养成分及抗营养因子含量(风干基础)

Table 1 Nutritional component and antinutritional factor contents of Eucommia ulmoides seed meal (air-dry basis) %

项目Items 含量Content
营养成分Nutritional components
干物质DM 93.25
粗蛋白质CP 30.53
粗灰分Ash 7.07
粗脂肪EE 2.19
粗纤维CF 12.60
钙Ca 0.39
磷P 0.77
抗营养因子Antinutritional factors
单宁Tannin 0.12
植酸Phytic acid 1.20
总皂苷Total saponins 4.72
胰蛋白酶抑制剂Trypsin inhibitor 2.43
表2 杜仲籽粕氨基酸含量(风干基础)

Table 2 Amino acid contents of Eucommia ulmoides seed meal (air-dry basis) %

项目Items 含量Content
必需氨基酸EAA
精氨酸Arg 1.71
组氨酸His 0.73
异亮氨酸Ile 1.21
亮氨酸Leu 1.78
赖氨酸Lys 0.48
苯丙氨酸Phe 0.94
酪氨酸Tyr 0.39
缬氨酸Val 1.24
蛋氨酸Met 0.41
苏氨酸Thr 0.96
甘氨酸Gly 1.15
非必需氨基酸NEAA
天冬氨酸Asp 2.08
丝氨酸Ser 0.99
胱氨酸Cys 0.40
谷氨酸Glu 3.11
丙氨酸Ala 1.19
脯氨酸Pro 1.37

1.2 试验设计与饲粮

动物饲养和屠宰试验符合西北农林科技大学实验动物管理与伦理审查委员会的相关规定,批准编号为DK2022061。选取450只健康状况良好、初始体重相近的50周龄海兰褐蛋鸡,随机分为5组,每组6个重复,每个重复15只鸡。对照组(CON组)饲喂基础饲粮,试验组分别饲喂以杜仲籽粕等蛋白质替代基础饲粮中10%(EUSM10组)、20%(EUSM20组)、30%(EUSM30组)和40%(EUSM40组)豆粕的饲粮。试验期13周,其中预试期1周,正试期12周。饲粮参照NRC(1994)和《鸡饲养标准》(NY/T 33—2004)配制,其组成及营养水平见表3
表3 饲粮组成及营养水平(风干基础)

Table 3 Composition and nutrient levels of diets (air-dry basis) %

项目
Items
组别Groups
CON EUSM10 EUSM20 EUSM30 EUSM40
原料Ingredients
玉米Corn 61.00 61.10 60.90 59.37 57.04
豆粕Soybean meal 26.50 22.86 19.53 17.06 15.10
杜仲籽粕Eucommia ulmoides seed meal 3.46 6.92 10.38 13.84
石粉Limestone 10.00 10.00 10.00 10.00 10.00
大豆油Soybean oil 0.50 0.50 0.50 0.97 1.72
DL-蛋氨酸DL-Met 0.01 0.01 0.02
L-赖氨酸盐酸盐L-Lys·HCl 0.07 0.13 0.19 0.25
胱氨酸Cys 0.01 0.01 0.02 0.03
预混料Premix1) 2.00 2.00 2.00 2.00 2.00
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 11.05 12.38 12.56 12.79 13.08
粗蛋白质CP 16.45 16.02 15.81 16.82 16.40
钙Ca 3.74 3.96 4.13 4.65 4.83
有效磷AP 0.38 0.39 0.41 0.42 0.49
赖氨酸Lys 0.86 0.83 0.80 0.79 0.79
蛋氨酸Met 0.27 0.25 0.25 0.25 0.25
胱氨酸Cys 0.29 0.29 0.28 0.28 0.28

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 12 500 IU,VD3 4 125 IU,VE 15 IU,VK 2 mg,VB12 0.02 mg,VB1 1 mg,VB2 8.5 mg,泛酸钙 calcium pantothenate 11 mg,烟酸nicotinic acid 32.5 mg,吡哆醇 pyridoxine 8 mg,生物素 biotin 0.5 mg,叶酸 folic acid 1.25 mg,植酸酶 phytase 500 mg,Mn 65 mg,I 1 mg,Fe 60 mg,Cu 8 mg,Zn 66 mg。
2)代谢能和有效磷为根据《中国饲料成分及营养价值表(2020年第31版)》所得计算值,其余为实测值。ME and AP were calculated values according to Tables of Feed Composition and Nutritive Values in China (31st edition, 2020), while the others were measured values.

1.3 饲养管理

蛋鸡采用4层阶梯式笼养系统饲养,舍内环境控制参数为温度18~22 ℃,相对湿度30%~50%,每天光照16 h。每日于07:00、11:30和16:00定时饲喂,17:00定时集蛋。养殖期间蛋鸡自由采食和饮水,进行自动化清粪及环境调控。

1.4 样品采集

饲养试验最后3 d,以重复为单位采用全收粪法每24 h收集1次试验鸡排泄物,剔除杂物后,加入10%稀盐酸溶液进行固氮处理,将3 d样品混合均匀,用于测定养分表观利用率。饲养试验结束后,每重复随机选取1只体况健康的蛋鸡(每组6只,共计30只)进行屠宰取样。使用预冷并经无菌处理的解剖器械(手术剪、镊子),分离出胰腺、十二指肠、空肠、回肠及盲肠。刮取十二指肠、空肠和回肠黏膜,用于测定消化酶活性;收集盲肠内容物,用于测定微生物区系。所有样品采集后立即放入液氮速冻,随后转移至-80 ℃超低温冰箱保存待测。

1.5 指标测定及方法

1.5.1 杜仲籽粕营养成分及抗营养因子含量

干物质含量采用105 ℃烘干法(GB/T 6435—2014)进行测定,粗蛋白质含量采用凯氏定氮法(GB/T 6432—2018)进行测定,粗脂肪含量采用索氏抽提法(GB/T 6433—2025)进行测定,粗灰分含量采用高温灼烧法(GB/T 6438—2007)进行测定,粗纤维含量采用过滤法(GB/T 6434—2006)进行测定,钙含量采用乙二胺四乙酸滴定法(GB/T 6436—2018)进行测定,磷含量采用钼黄比色法(GB/T 6437—2018)进行测定;采用酸水解法(GB/T 18246—2019)处理样品后,使用日立L-8900型全自动氨基酸分析仪测定氨基酸含量。单宁、植酸和胰蛋白酶抑制剂含量采用南京建成生物工程研究所生产的试剂盒进行测定,总皂苷含量委托斯坦德检测集团股份有限公司测定。

1.5.2 生产性能

试验期间,每天记录蛋鸡采食量、产蛋量、破蛋数和蛋重,分别计算试验第1~4周、第5~8周、第9~12周和试验全期的产蛋率、平均蛋重、平均日采食量和料蛋比。

1.5.3 养分表观利用率

将粪样置于65 ℃烘箱中烘48 h,室温回潮24 h,粉碎后过40目筛备用。参照1.5.1中方法测定饲粮及粪样中干物质、粗蛋白质、粗脂肪、粗灰分、钙和磷含量,并计算养分表观利用率。计算公式如下:
养分表观利用率(%)=100×(养分摄入量-养分排泄量)/养分摄入量。

1.5.4 小肠消化酶活性

黏膜匀浆制备:取2 mL离心管,加入900 μL生理盐水及匀浆小钢珠,置于冰盒中预冷。称取各肠段冻存肠道黏膜约0.1 g,采用组织匀浆机机械匀浆3 min,重复2次,以2 200×g离心15 min,取上清液置于1.5 mL离心管中待测。
消化酶活性测定:使用南京建成生物工程研究所生产的试剂盒测定胰蛋白酶、淀粉酶和脂肪酶活性,具体操作步骤按照相应试剂盒说明书进行。

1.5.5 盲肠微生物区系

采用16S rRNA高通量测序技术分析盲肠微生物区系。取盲肠内容物样本提取基因组DNA,对16S rRNA基因的V3~V4可变区进行PCR扩增;构建测序文库后,经Qubit定量及文库质量检测合格后进行上机测序。对原始测序数据进行过滤处理获得有效序列,随后进行操作分类单元(OTU)聚类及统计分析。计算各样本的α多样性指数;基于Abund_jaccard距离矩阵,通过主坐标分析(PCoA)对β多样性进行可视化分析;分析物种组成及丰度,并采用线性判别分析(LDA)效应大小(LEfSe)分析组间差异菌群。

1.6 数据统计与分析

利用SPSS 27.0软件对试验数据进行单因素方差分析,差异显著者采用Duncan氏法进行多重比较;采用曲线估计法确定杜仲籽粕替代豆粕比例对各指标的线性和二次影响。利用GraphPad Prism 9.0软件作图。结果用平均值和均值标准误(SEM)表示,以P<0.05作为差异显著的判断标准。

2 结果与分析

2.1 杜仲籽粕替代豆粕对产蛋后期蛋鸡生产性能的影响

表4可知,随着试验期的延长,产蛋率整体呈现降低趋势,且降低程度随杜仲籽粕替代比例的升高而增加。与CON组相比,EUSM10、EUSM20、EUSM30和EUSM40组第1~4周料蛋比显著降低(P<0.05),第5~12周料蛋比无显著变化(P>0.05)。在整个试验期(第1~12周),与CON组相比,EUSM10、EUSM20、EUSM30和EUSM40组平均日采食量、平均蛋重和料蛋比均显著降低(P<0.05),EUSM10组产蛋率无显著变化(P>0.05),EUSM20、EUSM30和EUSM40组产蛋率显著降低(P<0.05),且随着杜仲籽粕替代比例的升高,产蛋率、平均日采食量、平均蛋重和料蛋比呈线性和二次变化(P<0.05)。
表4 杜仲籽粕替代豆粕对产蛋后期蛋鸡生产性能的影响

Table 4 Effects of replacing soybean meal with Eucommia ulmoides seed meal on performance of laying hens in late laying period

项目
Items
组别Groups SEM PP-value
CON EUSM10 EUSM20 EUSM30 EUSM40 方差分析
ANOVA
线性
Linear
二次
Quadratic
产蛋率Laying rate/%
第1~4周
Weeks 1 to 4
86.97a 83.06a 78.10b 78.78b 74.05c 0.009 <0.001 <0.001 <0.001
第5~8周
Weeks 5 to 8
87.94a 87.22a 79.60b 75.99c 63.61d 0.005 <0.001 <0.001 <0.001
第9~12周
Weeks 9 to 12
82.91a 82.30a 79.48b 71.01c 50.54d 0.032 <0.001 <0.001 <0.001
第1~12周
Weeks 1 to 12
86.64a 86.19a 79.06b 74.93c 62.73d 0.018 <0.001 <0.001 <0.001
平均日采食量ADFI/(g/d)
第1~4周
Weeks 1 to 4
120.67a 108.61b 100.24c 96.83c 88.53d 2.094 <0.001 <0.001 <0.001
第5~8周
Weeks 5 to 8
125.79a 116.55b 109.44c 99.80d 87.54e 2.508 <0.001 <0.001 <0.001
第9~12周
Weeks 9 to 12
127.67a 121.22b 107.89c 99.50d 68.67e 3.919 <0.001 <0.001 <0.001
第1~12周
Weeks 1 to 12
124.71a 115.46b 105.86c 98.71d 81.58e 2.760 <0.001 <0.001 <0.001
平均蛋重Average egg weight/g
第1~4周
Weeks 1 to 4
64.26a 63.11b 63.02b 62.90b 63.22b 0.134 0.010 0.013 <0.001
第5~8周
Weeks 5 to 8
65.16a 63.31c 63.71bc 63.84b 63.68bc 0.134 <0.001 0.008 <0.001
第9~12周
Weeks 9 to 12
65.68a 64.11bc 64.18b 64.13bc 63.65c 0.157 <0.001 <0.001 <0.001
第1~12周
Weeks 1 to 12
65.03a 63.51b 63.64b 63.63b 63.52b 0.127 <0.001 <0.001 <0.001
料蛋比Feed/egg
第1~4周
Weeks 1 to 4
2.24a 2.08b 2.05bc 1.99bc 1.91c 0.027 <0.001 <0.001 <0.001
第5~8周
Weeks 5 to 8
2.21 2.11 2.17 2.08 2.18 0.090 0.084 0.438 0.148
第9~12周
Weeks 9 to 12
2.22 2.15 2.12 2.20 2.13 0.016 0.147 0.216 0.336
第1~12周
Weeks 1 to 12
2.22a 2.12b 2.11b 2.09b 2.07b 0.014 <0.001 <0.001 <0.001

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 杜仲籽粕替代豆粕对产蛋后期蛋鸡养分表观利用率的影响

表5可知,与CON组相比,EUSM10、EUSM20、EUSM30和EUSM40组干物质表观利用率显著提高(P<0.05),且随杜仲籽粕替代比例的升高呈线性和二次变化(P<0.05);EUSM10、EUSM20和EUSM30组粗蛋白质和粗脂肪表观利用率无显著变化(P>0.05);EUSM40组粗蛋白质表观利用率显著降低(P<0.05),粗脂肪表观利用率显著提高(P<0.05)。各组间粗灰分、钙和磷表观利用率无显著差异(P>0.05)。
表5 杜仲籽粕替代豆粕对产蛋后期蛋鸡养分表观利用率的影响

Table 5 Effects of replacing soybean meal with Eucommia ulmoides seed meal on nutrient apparent utilization rates of laying hens in late laying period %

项目
Items
组别Groups SEM PP-value
CON EUSM10 EUSM20 EUSM30 EUSM40 方差分析
ANOVA
线性
Linear
二次
Quadratic
干物质DM 66.94c 73.73ab 73.29ab 71.14b 77.66a 0.884 <0.001 0.001 0.006
粗蛋白质CP 47.48a 44.89a 45.25a 39.07ab 35.37b 1.467 0.038 0.002 0.007
粗脂肪EE 81.82b 84.37b 85.03b 85.26b 90.72a 0.736 <0.001 <0.001 <0.001
粗灰分Ash 35.79 35.77 43.13 40.87 38.88 1.458 0.106 0.134 0.096
钙Ca 37.98 43.98 43.66 35.31 45.77 1.516 0.145 0.630 0.888
磷P 39.04 35.30 35.29 27.64 32.00 1.383 0.093 0.023 0.059

2.3 杜仲籽粕替代豆粕对产蛋后期蛋鸡氨基酸表观利用率的影响

表6可知,与CON组相比,EUSM10组赖氨酸、苏氨酸、缬氨酸、谷氨酸、甘氨酸、丙氨酸及总氨基酸表观利用率显著提高(P<0.05),其他氨基酸表观利用率无显著变化(P>0.05);EUSM20组赖氨酸、蛋氨酸、苏氨酸、胱氨酸、谷氨酸、甘氨酸及总氨基酸表观利用率显著提高(P<0.05),天冬氨酸表观利用率显著降低(P<0.05);EUSM30组赖氨酸表观利用率显著提高(P<0.05),其他氨基酸表观利用率均有所下降;EUSM40组赖氨酸、苏氨酸、酪氨酸、缬氨酸、谷氨酸、甘氨酸、胱氨酸、丙氨酸及总氨基酸表观利用率显著提高(P<0.05),且数值与EUSM10组接近,天冬氨酸表观利用率显著降低(P<0.05)。
表6 杜仲籽粕替代豆粕对产蛋后期蛋鸡氨基酸表观利用率的影响

Table 6 Effects of replacing soybean meal with Eucommia ulmoides seed meal on amino acid apparent utilization rates of laying hens in late laying period %

项目
Items
组别Groups SEM PP-value
CON EUSM10 EUSM20 EUSM30 EUSM40 方差分析
ANOVA
线性
Linear
二次
Quadratic
必需氨基酸EAA
精氨酸Arg 85.72 87.18 87.90 85.45 76.64 1.503 0.088 0.057 0.015
组氨酸His 97.02a 95.57ab 96.20a 93.79b 97.04a 0.419 0.048 0.572 0.165
异亮氨酸Ile 90.45 94.49 93.23 89.78 95.30 0.789 0.070 0.390 0.697
亮氨酸Leu 94.97ab 97.68a 94.82ab 92.14b 97.45a 0.640 0.008 0.899 0.634
赖氨酸Lys 93.25b 98.90a 97.56a 97.05a 97.38a 0.569 0.002 0.115 0.019
蛋氨酸Met 92.01b 92.29b 96.22a 91.07b 92.47b 0.565 0.011 0.944 0.374
苯丙氨酸Phe 94.07ab 97.28ab 95.05ab 91.98b 97.43a 0.692 0.031 0.784 0.813
苏氨酸Thr 89.72b 96.74a 93.63a 81.32c 95.22a 1.529 <0.001 0.698 0.881
酪氨酸Tyr 92.64bc 95.69ab 93.82abc 90.82c 96.66a 0.673 0.013 0.525 0.621
缬氨酸Val 89.81bc 96.14a 92.35ab 87.70c 95.56a 0.992 0.003 0.677 0.892
甘氨酸Gly 73.83b 89.13a 84.20a 61.93c 89.03a 2.926 <0.001 0.884 0.963
非必需氨基酸NEAA
天冬氨酸Asp 90.51a 88.46ab 82.50c 86.48abc 85.31bc 0.929 0.034 0.055 0.400
丝氨酸Ser 92.45a 96.44a 96.24a 71.60b 96.53a 2.644 <0.001 0.391 0.527
胱氨酸Cys 90.89b 87.82b 96.80a 90.27b 96.79a 1.125 0.005 0.072 0.194
谷氨酸Glu 94.38b 97.68a 97.57a 90.71c 97.63a 0.748 <0.001 0.930 0.994
丙氨酸Ala 93.31b 96.44a 95.02ab 87.49c 96.24a 0.920 <0.001 0.653 0.745
脯氨酸Pro 92.82 89.19 96.65 90.01 94.73 1.002 0.063 0.532 0.795
总氨基酸Total AA 91.34b 95.10a 94.31a 88.71c 94.49a 0.694 <0.001 0.987 0.992

2.4 杜仲籽粕替代豆粕对产蛋后期蛋鸡小肠消化酶活性的影响

表7可知,与CON组相比,EUSM10、EUSM20、EUSM30和EUSM40组十二指肠和空肠淀粉酶及回肠胰蛋白酶活性无显著变化(P>0.05);EUSM10组十二指肠脂肪酶和胰蛋白酶活性显著提高(P<0.05),空肠脂肪酶及回肠淀粉酶活性显著降低(P<0.05);EUSM20组十二指肠和回肠脂肪酶活性显著提高(P<0.05),十二指肠和空肠胰蛋白酶、空肠脂肪酶及回肠淀粉酶活性显著降低(P<0.05);EUSM30组空肠胰蛋白酶和脂肪酶活性显著降低(P<0.05);EUSM40组十二指肠脂肪酶活性显著提高(P<0.05),空肠胰蛋白酶和脂肪酶活性显著降低(P<0.05)。随着杜仲籽粕替代比例的升高,空肠和回肠脂肪酶活性呈二次变化(P<0.05)。其中,空肠脂肪酶活性在替代比例为10%时显著降低(P<0.05),之后随替代比例的升高逐渐提高;回肠脂肪酶活性则呈先升高后降低的趋势,峰值出现在EUSM20组。
表7 杜仲籽粕替代豆粕对产蛋后期蛋鸡小肠消化酶活性的影响

Table 7 Effects of replacing soybean meal with Eucommia ulmoides seed meal on small intestinal digestive enzyme activities of laying hens in late laying period U/mg prot

项目
Items
组别Groups SEM PP-value
CON EUSM10 EUSM20 EUSM30 EUSM40 方差分析
ANOVA
线性
Linear
二次
Quadratic
十二指肠Duodenum
胰蛋白酶Trypsin 66.43b 81.56a 57.39c 25.01d 32.79d 4.041 <0.001 <0.001 <0.001
淀粉酶Amylase 14.04 14.04 13.26 13.39 11.44 0.395 0.212 0.034 0.069
脂肪酶Lipase 4.73c 6.72b 8.76a 4.19c 7.74ab 0.396 <0.001 0.220 0.274
空肠Jejunum
胰蛋白酶Trypsin 67.56a 73.27a 47.34b 55.38b 25.87c 3.447 <0.001 <0.001 <0.001
淀粉酶Amylase 14.50 13.90 13.07 13.79 14.13 0.176 0.118 0.503 0.047
脂肪酶Lipase 12.51a 4.55c 5.55c 9.68b 9.93b 0.648 <0.001 0.995 <0.001
回肠Ileum
胰蛋白酶Trypsin 42.46 45.16 41.75 40.42 34.96 1.748 0.469 0.112 0.176
淀粉酶Amylase 14.96a 13.79b 13.39b 15.49a 14.95a 0.205 0.001 0.233 0.034
脂肪酶Lipase 2.97bc 2.63bc 5.26a 3.39b 2.26c 0.230 <0.001 0.698 0.003

2.5 杜仲籽粕替代豆粕对产蛋后期蛋鸡盲肠微生物区系的影响

2.5.1 盲肠微生物多样性
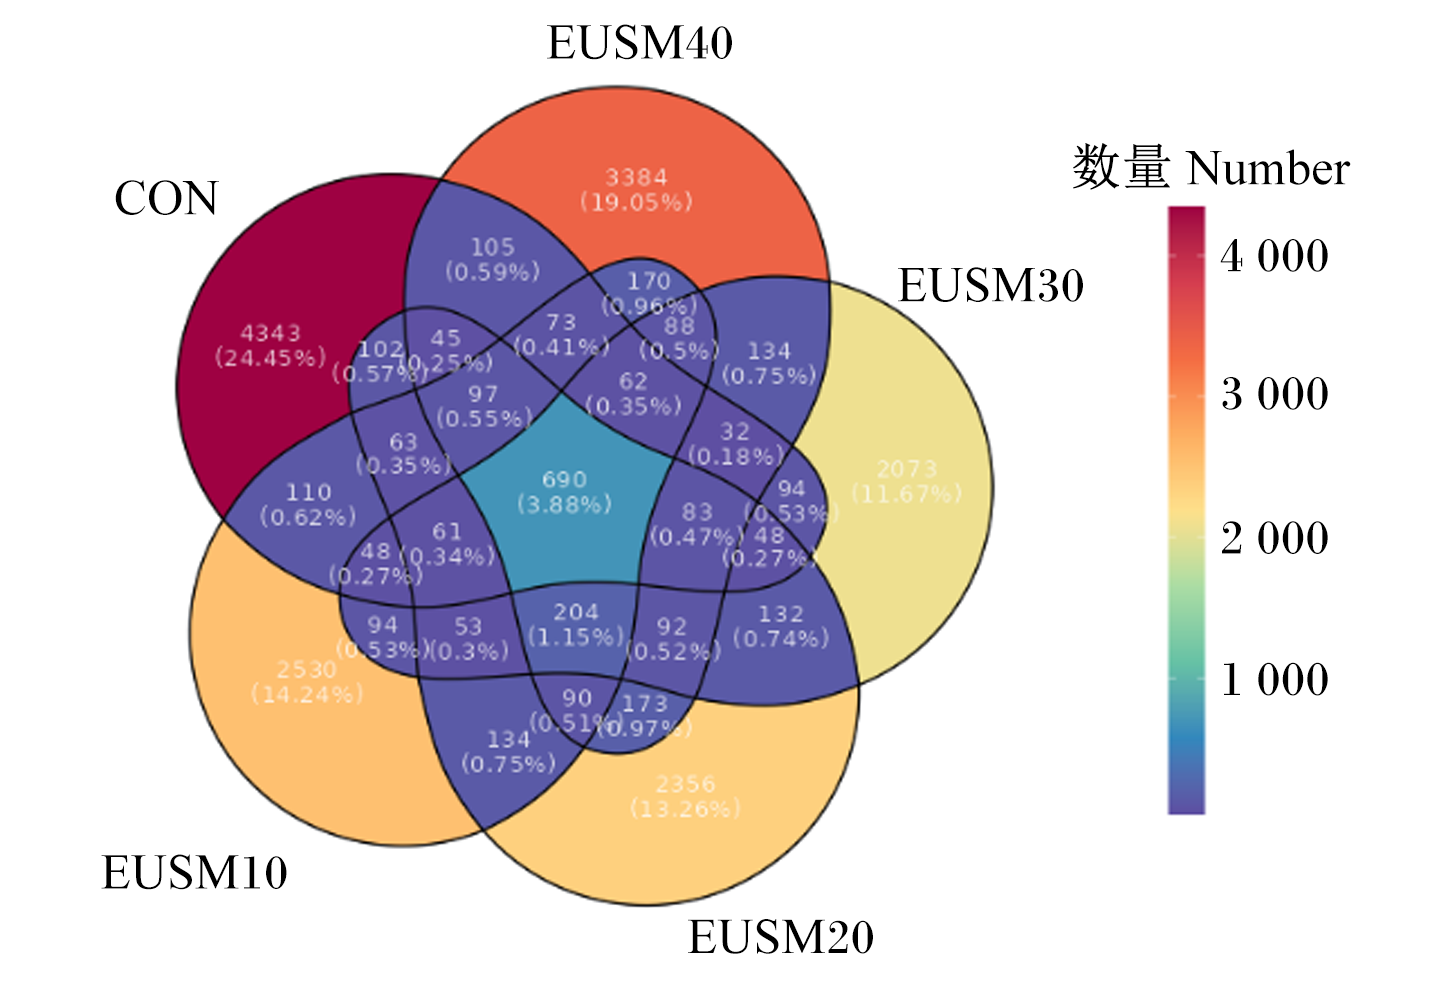
图1可知,与CON组相比,EUSM10、EUSM20、EUSM30和EUSM40组盲肠微生物物种丰度降低。
图1 盲肠微生物韦恩图

CON:CON组 CON group;EUSM10:EUSM10组 EUSM10 group;EUSM20:EUSM20组 EUSM20 group;EUSM30:EUSM30组 EUSM30 group;EUSM40:EUSM40组 EUSM40 group。下图同 the same as below。

Fig.1 Venn diagram of cecal microbiota

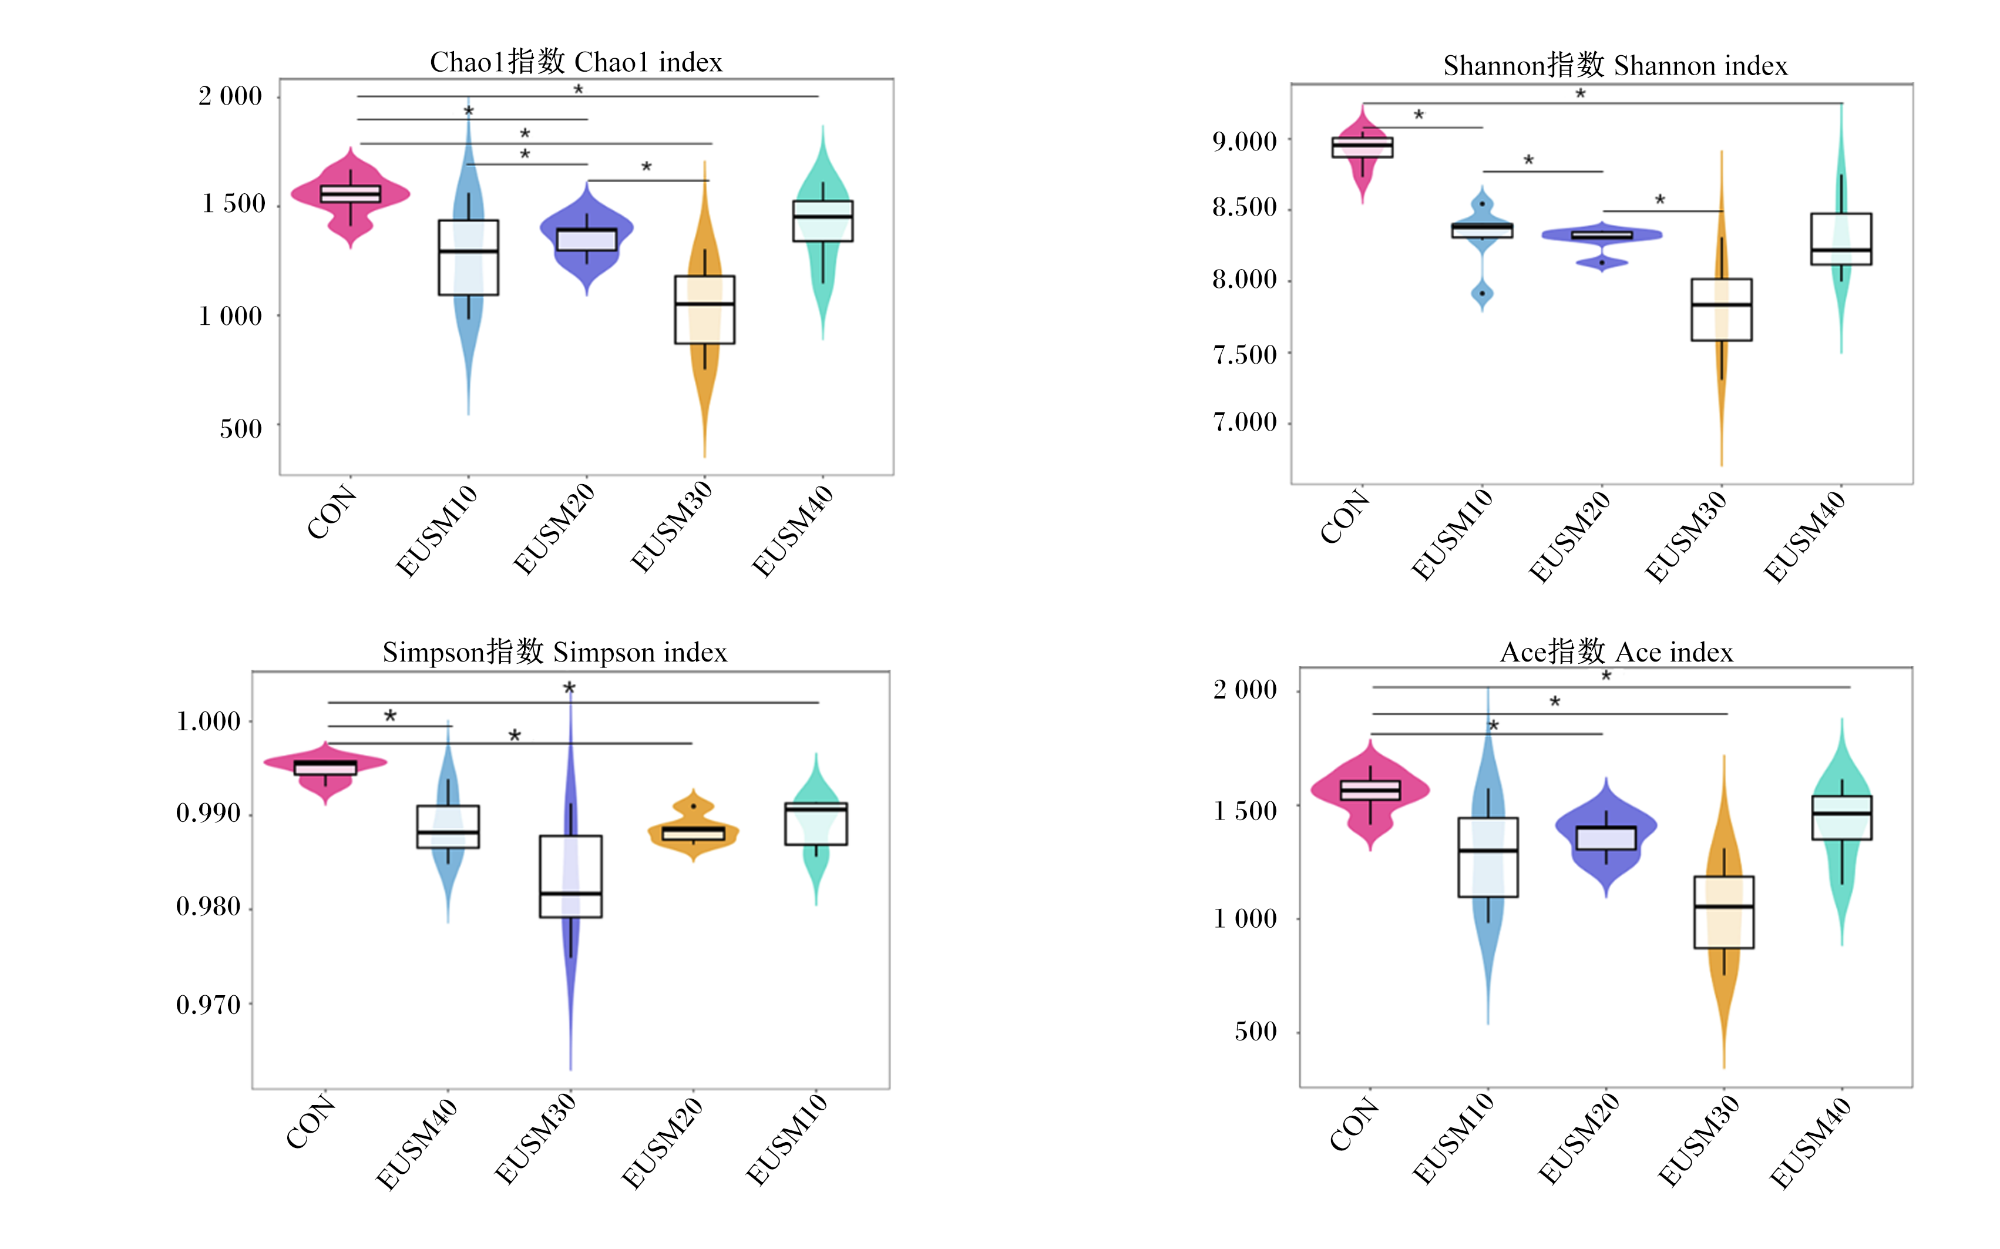
图2可知,与CON组相比,杜仲籽粕替代豆粕后,蛋鸡盲肠微生物α多样性指数(Chao1、Shannon、Simpson和Ace指数)显著下降(P<0.05)。
图2 盲肠微生物α多样性分析

*表示差异显著(P<0.05)。

Fig.2 α-diversity analysis of cecal microbiota

* indicated a significant difference (P<0.05).

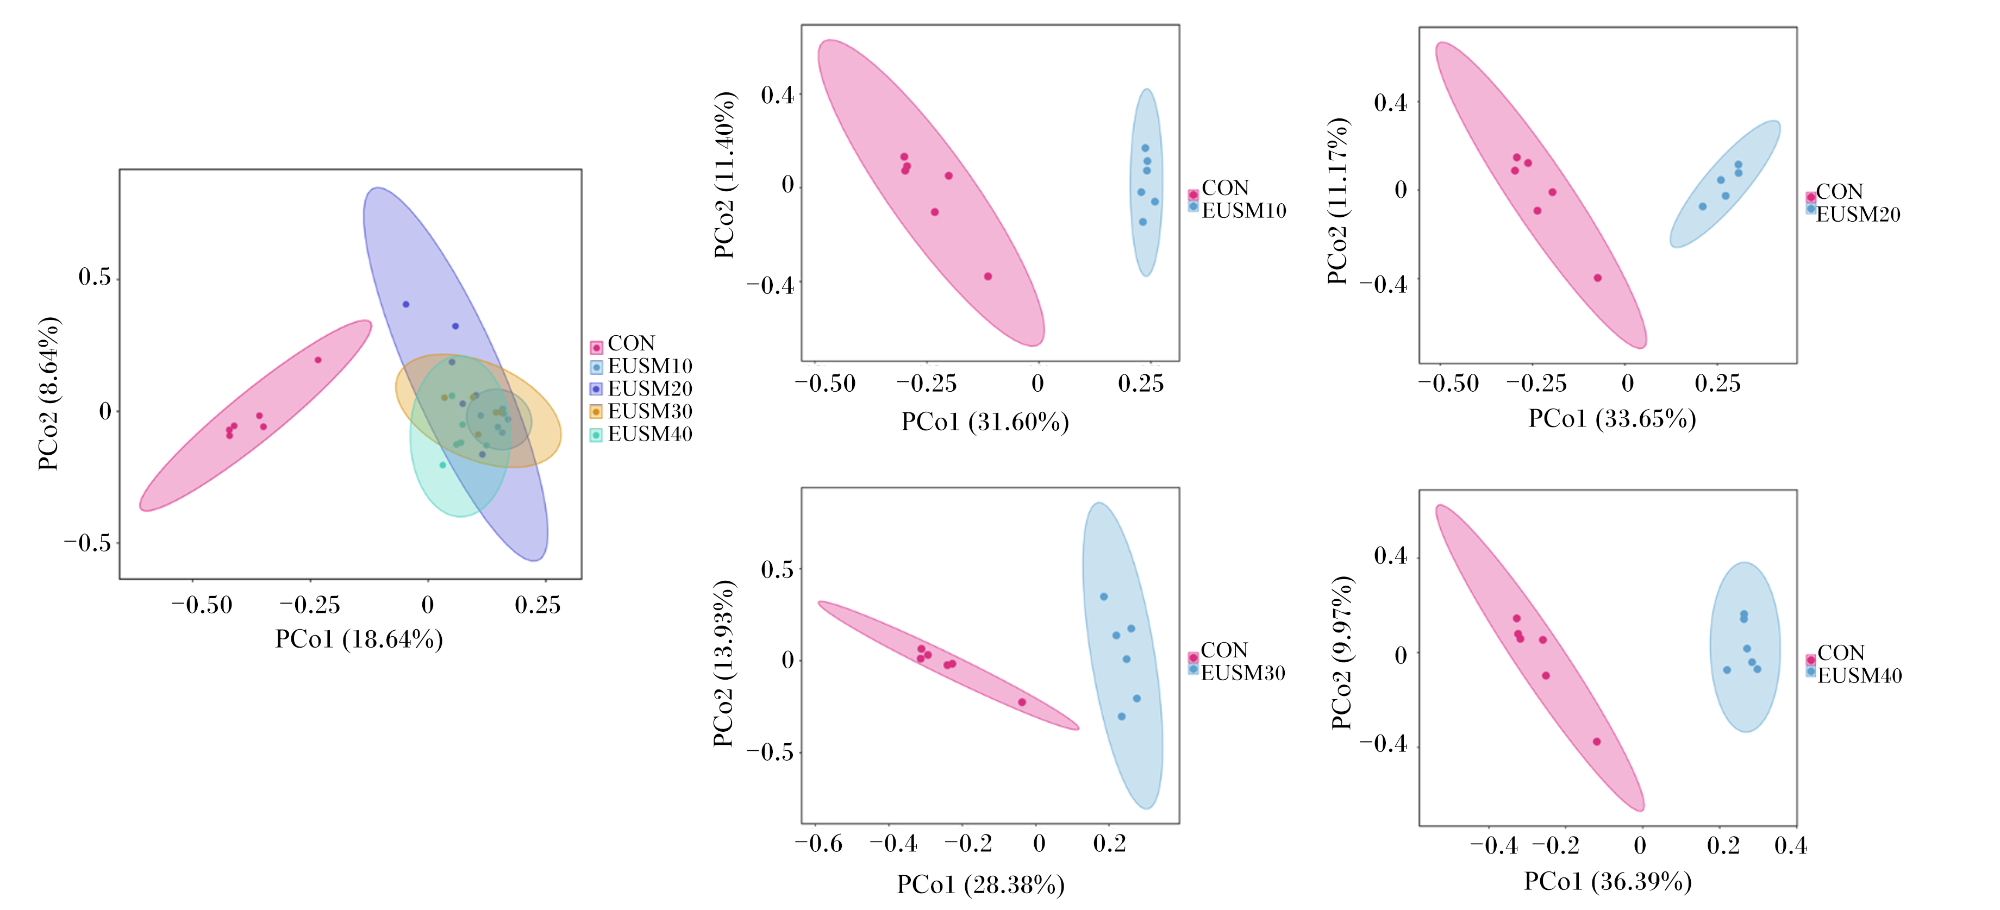
图3可知,基于Abund_jaccard距离矩阵的PCoA结果显示,CON组与EUSM10、EUSM20、EUSM30和EUSM40组的盲肠微生物群落结构存在明显分离,表明杜仲籽粕替代豆粕可改变蛋鸡盲肠微生物群落组成。
图3 盲肠微生物β多样性分析

PCo1:第1主坐标 the first principal coordinate;PCo2:第2主坐标 the second principal coordinate。

Fig.3 β-diversity analysis of cecal microbiota

2.5.2 盲肠微生物组成及差异分析

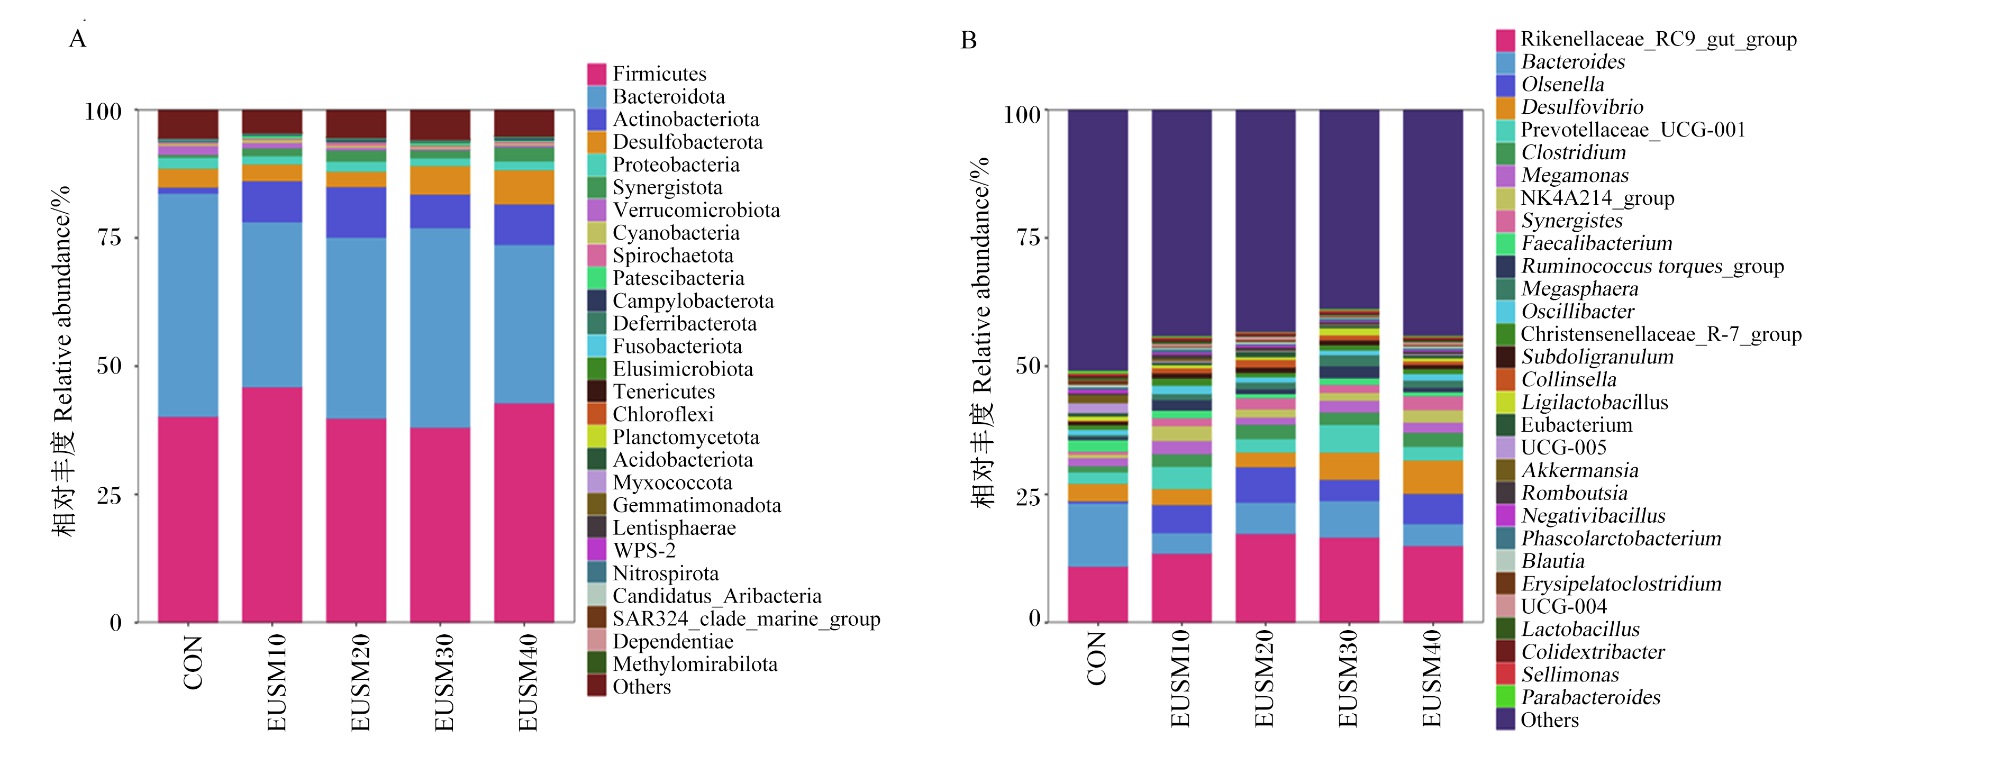
图4-A可知,在门水平上,各组优势菌群分别为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、放线菌门(Actinobacteriota)、脱硫杆菌门(Desulfobacterota)、变形菌门(Proteobacteria)和互养菌门(Synergistota)。由图4-B可知,在属水平上,相对丰度>2%的菌属包括理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、拟杆菌属(Bacteroides)、奥尔森氏菌属(Olsenella)、脱硫弧菌属(Desulfovibrio)、普雷沃氏菌科UCG-001(Prevotellaceae_UCG-001)、梭菌属(Clostridium)、巨单胞菌属(Megamonas)、NK4A214群(NK4A214_group)、互养菌属(Synergistes)和粪杆菌属(Faecalibacterium)等。
图4 盲肠微生物门(A)和属(B)水平组成

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Actinobacteriota:放线菌门;Desulfobacterota:脱硫杆菌门;Proteobacteria:变形菌门;Synergistota:互养菌门;Verrucomicrobiota:疣微菌门;Cyanobacteria:蓝细菌门;Spirochaetota:螺旋体门;Patescibacteria:帕氏菌门;Campylobacterota:弯曲杆菌门;Deferribacterota:脱铁杆菌门;Fusobacteriota:梭杆菌门;Elusimicrobiota:迷踪微菌门;Tenericutes:柔膜菌门;Chloroflexi:绿弯菌门;Planctomycetota:浮霉菌门;Acidobacteriota:酸杆菌门;Myxococcota:黏球菌门;Gemmatimonadota:芽单胞菌门;Lentisphaerae:弯月菌门;Nitrospirota:硝化螺旋菌门;Candidatus_Aribacteria:候选阿里菌门;SAR324_clade_marine_group:SAR324分支海洋类群;Dependentiae:依存菌门;Methylomirabilota:甲基米拉比罗菌门;Others:其他;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Bacteroides:拟杆菌属;Olsenella:奥尔森氏菌属;Desulfovibrio:脱硫弧菌属;Prevotellaceae_UCG-001:普雷沃氏菌科UCG-001;Clostridium:梭菌属;Megamonas:巨单胞菌属;NK4A214_group:NK4A214群;Synergistes:互养菌属;Faecalibacterium:粪杆菌属;Ruminococcus torques_group:扭链瘤胃球菌群;Megasphaera:巨球型菌属;Oscillibacter:颤杆菌属;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Subdoligranulum:小杆菌属;Collinsella:柯林斯菌属;Ligilactobacillus:轻乳杆菌属;Eubacterium:真杆菌属;Akkermansia:阿克曼菌属;Romboutsia:隆布茨菌属;Negativibacillus:负杆菌属;Phascolarctobacterium:考拉杆菌属;Blautia:布劳特氏菌属;Erysipelatoclostridium:丹毒梭菌属;Lactobacillus:乳杆菌属;Colidextribacter:共消化杆菌属;Sellimonas:塞利单胞菌属;Parabacteroides:副拟杆菌属。图5同 the same as Fig.5

Fig.4 Composition of cecal microbiota at phylum (A) and genus (B) levels

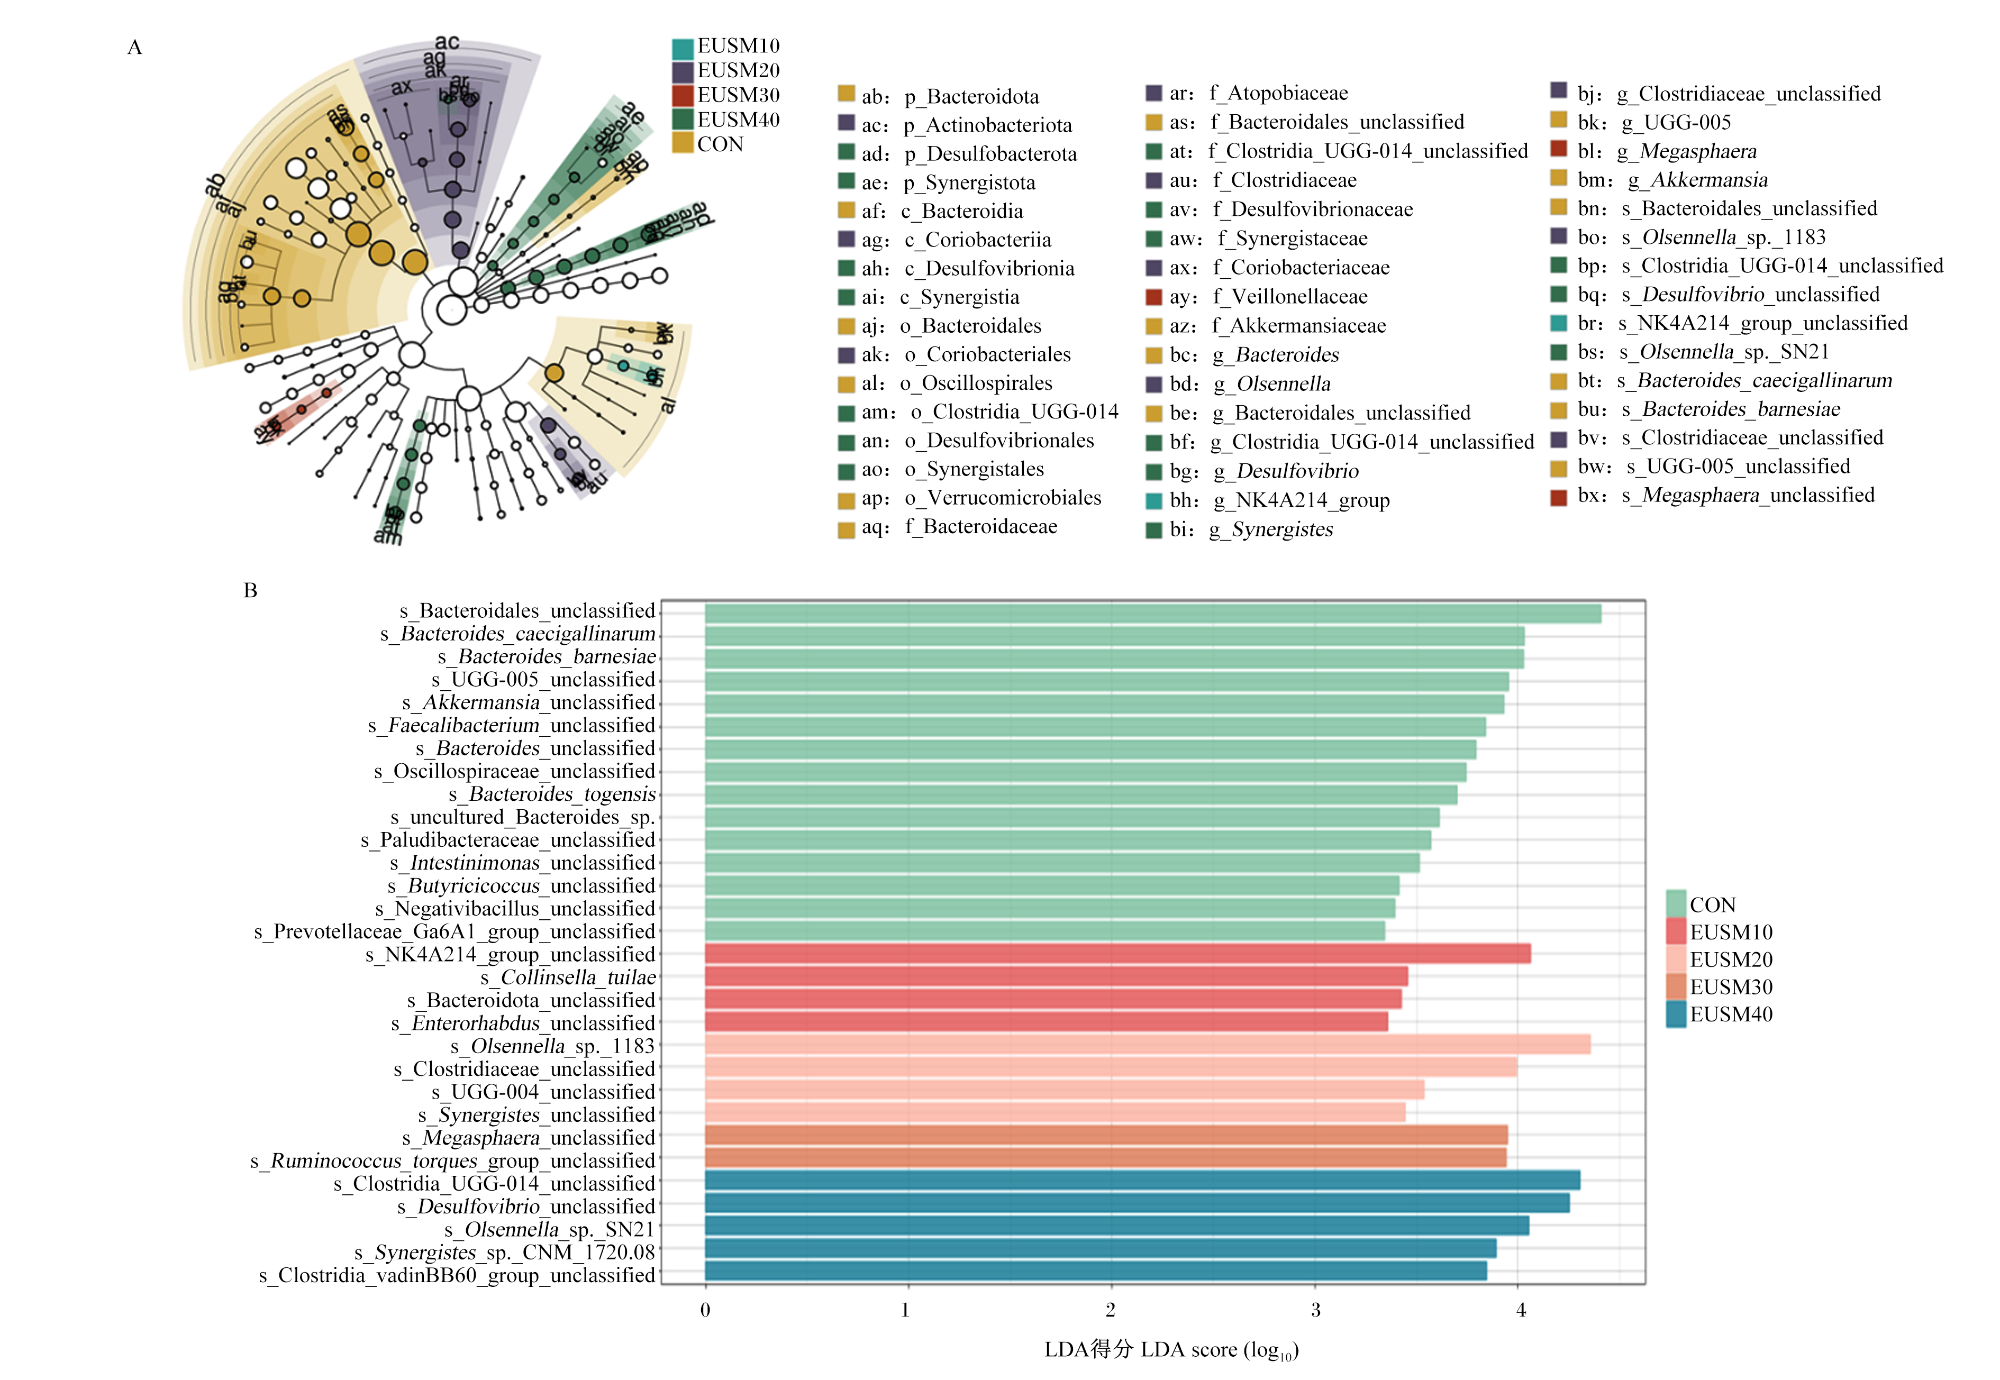
LEfSe分析结果(图5)表明,拟杆菌门、拟杆菌属、颤螺旋菌目(Oscillospirales)等富集于CON组,NK4A214群富集于EUSM10组,放线菌门、红蝽菌纲(Coriobacteriia)、阿托波菌科(Atopobiaceae)、梭菌科(Clostridiaceae)、奥尔森氏菌属等富集于EUSM20组,未分类巨球型菌属(Megasphaera_unclassified)和未分类扭链瘤胃球菌群(Ruminococcus torques_group_unclassified)富集于EUSM30组,脱硫杆菌门、梭菌纲UGG-014(Clostridia UCG-014)、脱硫弧菌目(Desulfovibrionales)等富集于EUSM40组。
图5 盲肠微生物LEfSe分析

A:LEfSe分析进化分支图;B:LDA得分柱状图(LDA得分>3.0)。A: evolutionary branching diagram of LEfSe analysis; B: histogram of LDA score (LDA score>3.0).

p_:门 phylum;c_:纲 class;o_:目 order;f_:科 family;g_:属 genus;s_:种 species。Bacteroidia:拟杆菌纲;Coriobacteriia:红蝽菌纲;Desulfovibrionia:脱硫弧菌纲;Synergistia:互养菌纲;Bacteroidales:拟杆菌目;Coriobacteriales:红蝽菌目;Oscillospirales:颤螺旋菌目;Clostridia_UGG-014:梭菌纲UGG-014;Desulfovibrionales:脱硫弧菌目;Synergistales:互养菌目;Verrucomicrobiales:疣微菌目;Bacteroidaceae:拟杆菌科;Atopobiaceae:阿托波菌科;Bacteroidales_unclassified:未分类拟杆菌目;Clostridia_UGG-014_unclassified:未分类梭菌纲UGG-014;Clostridiaceae:梭菌科;Desulfovibrionaceae:脱硫弧菌科;Synergistaceae:互养菌科;Coriobacteriaceae:红蝽菌科;Veillonellaceae:韦荣球菌科;Akkermansiaceae:阿克曼菌科;Bacteroidales_unclassified:未分类拟杆菌目;Clostridiaceae_unclassified:未分类梭菌科;Olsenella_sp._1183:奥尔森菌种1183;Desulfovibrio_unclassified:未分类脱硫弧菌属;NK4A214_group_unclassified:未分类NK4A214群;Olsenella_sp._SN21:奥尔森菌种SN21;Bacteroides_caecigallinarum:鸡盲肠拟杆菌;Bacteroides_barnesiae:巴恩斯拟杆菌;UGG-005_unclassified:未分类UGG-005;Megasphaera_unclassified:未分类巨球型菌属;Akkermansia_unclassified:未分类阿克曼菌属;Faecalibacterium_unclassified:未分类粪杆菌属;Bacteroides_unclassified:未分类拟杆菌属;Oscillospiraceae_unclassified:未分类颤螺旋菌科;Bacteroides_togensis:塔根氏拟杆菌;uncultured_Bacteroides_sp.:未培养拟杆菌;Paludibacteraceae_unclassified:未分类沼杆菌科;Intestinimonas_unclassified:未分类肠单胞菌属;Butyricicoccus_unclassified:未分类丁酸球菌属;Negativibacillus_unclassified:未分类负杆菌属;Prevotellaceae_Ga6A1_group_unclassified:未分类普雷沃菌科Ga6A1群;NK4A214_group_unclassified:未分类NK4A214群;Collinsella_tuilae:图伊拉柯林斯菌;Bacteroidota_unclassified:未分类拟杆菌门;Enterorhabdus_unclassified:未分类肠杆菌属;UGG-004_unclassified:未分类UGG-004;Synergistes_unclassified:未分类互养菌属; Ruminococcus_torques_group_unclassified:未分类扭链瘤胃球菌群;Synergistes_sp._CNM_1720.08:互养菌属CNM 1720.08菌株;Clostridia_vadinBB60_group_unclassified:未分类梭菌纲vadinBB60群。

Fig.5 LEfSe analysis of cecal microbiota

表8可知,在门水平上,与CON组相比,EUSM10、EUSM20和EUSM40组盲肠放线菌门相对丰度显著提高(P<0.05),盲肠拟杆菌门相对丰度显著降低(P<0.05);EUSM10和EUSM20组盲肠脱硫杆菌门相对丰度无显著变化(P>0.05),EUSM30和EUSM40组盲肠脱硫杆菌门相对丰度显著提高(P<0.05);EUSM20和EUSM40组盲肠弯曲杆菌门和互养菌门相对丰度显著提高(P<0.05);EUSM10组盲肠弯曲杆菌门相对丰度显著降低(P<0.05)。在属水平上,与CON组相比,EUSM10、EUSM20和EUSM40组盲肠奥尔森氏菌属相对丰度显著提高(P<0.05);EUSM20组盲肠理研菌科RC9肠道群和UCG-004相对丰度显著提高(P<0.05);EUSM10组盲肠克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)相对丰度显著提高(P<0.05)。
表8 杜仲籽粕替代豆粕对产蛋后期蛋鸡盲肠门和属水平差异微生物相对丰度的影响

Table 8 Effects of replacing soybean meal with Eucommia ulmoides seed meal on relative abundance of differential microbiota at phylum and genus levels in cecum of laying hens in late laying period %

项目
Items
组别Groups SEM PP-value
CON EUSM10 EUSM20 EUSM30 EUSM40 方差分析
ANOVA
线性
Linear
二次
Quadratic
门水平Phylum level
拟杆菌门Bacteroidota 43.54a 32.18b 35.31b 43.27a 30.89b 1.505 0.003 0.076 0.214
脱硫杆菌门
Desulfobacterota
3.67b 3.28b 2.98b 5.54a 6.67a 0.349 <0.001 0.082 0.008
放线菌门Actinobacteriota 1.18b 8.00a 9.85a 6.54ab 7.91a 0.957 0.034 0.006 0.012
互养菌门Synergistota 0.55c 1.53b 2.17ab 1.54b 2.70a 0.191 0.001 0.322 0.027
弯曲杆菌门
Campylobacterota
0.15b 0.08c 0.32a 0.15b 0.33a 0.028 0.003 0.386 0.032
属水平Genus level
理研菌科RC9肠道群
Rikenellaceae_RC9_
gut_group
10.99b 11.21b 19.52a 16.45ab 16.71ab 1.156 0.033 0.646 0.013
拟杆菌属Bacteroides 12.36a 4.04b 4.59b 4.56b 4.30b 0.747 <0.001 0.005 <0.001
奥尔森氏菌属Olsenella 0.40b 4.29a 5.85a 2.15b 4.81a 0.507 <0.001 0.007 0.009
梭菌纲vadinBB60群
Clostridia_vadinBB60_
group
1.27b 2.23a 2.60a 2.15a 2.37a 0.138 0.009 <0.001 <0.001
NK4A214群
NK4A214_group
0.70c 2.60a 1.62b 2.11ab 2.42a 0.175 <0.001 0.041 0.002
未分类拟杆菌门
Bacteroidota_unclassified
0.98ab 1.25a 1.21a 1.15a 0.72b 0.059 0.013 0.162 0.024
克里斯滕森菌科R-7群
Christensenellaceae_
R-7_group
0.85b 1.71a 0.89b 0.28c 0.91b 0.105 <0.001 0.017 <0.001
UCG-004 0.04d 0.42bc 0.84a 0.16cd 0.52b 0.657 <0.001 0.004 0.019
毛螺菌属Lachnospira 2.11b 3.47a 2.49ab 2.27b 2.54ab 0.155 0.045 0.466 0.713
梭菌属Clostridium 1.25b 1.98ab 1.96ab 2.63a 1.66b 0.134 0.011 0.037 0.047
未分类梭菌科
Clostridiaceae_unclassified
0.90b 2.09ab 2.70a 1.56ab 1.92ab 0.201 0.045 0.077 0.181
互养菌属Synergistes 0.55c 1.53b 2.17ab 1.54b 2.70a 0.191 0.001 0.050 0.011

3 讨论

3.1 杜仲籽粕替代豆粕对产蛋后期蛋鸡生产性能的影响

本试验结果表明,杜仲籽粕等蛋白质替代豆粕比例为10%时,对产蛋后期蛋鸡的产蛋率无负面影响,而替代比例高于20%时,产蛋率显著下降,这一变化可能与平均日采食量的降低有关。随着试验期的延长,高替代比例组(EUSM30和EUSM40组)平均日采食量降低更为明显,产蛋率下降幅度随之增大,其中以EUSM40组表现最为显著;而EUSM10组在试验第9~12周采食量出现回升,说明蛋鸡对该替代比例的适应程度较好。与CON组相比,试验第1~4周料蛋比随替代比例的升高而降低,但试验第9~12周各组间料蛋比无显著差异。
这一现象可能是由于短期内采食量下降幅度较大,而试验中后期产蛋率与采食量的下降幅度趋于平衡所致。采食量降低受多种因素影响,可能与高添加量下杜仲籽粕中抗营养因子的负面作用以及饲粮代谢能的升高有关。本试验检测发现,杜仲籽粕中含有较豆粕更高含量的皂苷。皂苷具有苦味,会降低饲料适口性[6],同时能显著增加小肠黏膜细胞的通透性,从而影响营养物质的主动转运[7]。此外,与CON组相比,高替代比例组的饲粮代谢能提高了10%~20%,这也是导致采食量下降的重要原因。Liang等[8]研究发现,在饲粮中添加0、500、1 000和2 000 mg/kg杜仲叶提取物时,蛋鸡平均蛋重随杜仲叶提取物添加量的升高呈下降趋势,本试验结果与之相似。产蛋后期蛋鸡因生殖系统的高能耗特性,对饲粮养分的敏感性显著增强,因此替代方案需进一步优化能量、蛋白质与氨基酸三者间的平衡。从整个试验期来看,EUSM10组产蛋率未出现显著下降,且料蛋比有所降低,表明该比例可能是杜仲籽粕在蛋鸡饲粮中等蛋白质替代豆粕的临界点。

3.2 杜仲籽粕替代豆粕对产蛋后期蛋鸡养分利用和小肠消化酶活性的影响

本试验结果表明,杜仲籽粕含30.53%粗蛋白质、7.07%粗灰分、2.19%粗脂肪、12.60%粗纤维、0.39%钙和0.77%磷。与豆粕相比,杜仲籽粕的粗蛋白质含量较低,粗脂肪含量相近,粗纤维含量较高,钙和磷含量略高。氨基酸测定结果显示,杜仲籽粕氨基酸分布较为均衡,但整体氨基酸含量低于豆粕。在低替代比例下(EUSM10和EUSM20组),部分氨基酸(如谷氨酸、甘氨酸)的表观利用率显著提高,EUSM30组氨基酸表观利用率则普遍下降,这种波动可能与不同替代比例下肠道消化酶活性的动态变化相关。而EUSM40组氨基酸表观利用率出现恢复现象,数值上接近EUSM10组,这可能与肠道微生物通过分泌特定代谢产物补偿宿主消化能力不足有关。Lushchak[9]研究发现,肠道微生物可通过分泌肽酶降解宿主无法完全消化的蛋白质,形成“宿主-微生物酶双系统”。本试验中,试验组粗蛋白质表观利用率相较于CON组均有所下降,且EUSM40组显著下降,这可能与杜仲籽粕中的抗营养因子有关。研究表明,单宁能在畜禽肠道中与蛋白质结合形成不溶性复合物,影响蛋白质和碳水化合物的消化过程[10];皂苷则可通过抑制胰蛋白酶、胰凝乳蛋白酶等消化酶的活性,降低畜禽对蛋白质的利用率[11]。该结果提示,杜仲籽粕高比例替代豆粕可能会影响蛋鸡的养分吸收利用。
动物的养分利用率受饲粮组成、消化性、机体状态等多种因素的影响[12]。本研究结果表明,与CON组相比,试验组干物质表观利用率均显著提高,且以EUSM40组为最高(77.66%);粗脂肪表观利用率也随杜仲籽粕替代比例的升高而提高,EUSM40组显著提升至90.72%。这一现象可能与十二指肠中脂肪酶活性显著提高有关,也可能与蛋鸡采食量大幅降低后,机体代偿性提高养分利用率有关。黄林等[13]研究发现,在肉鸡饲粮中添加杜仲提取物可显著提升干物质和粗脂肪的表观利用率,本试验结果与之相似。营养物质的消化吸收及代谢是一个复杂的生理过程。Rideau等[14]研究表明,家禽的消化酶主要由胰腺分泌,在十二指肠和空肠分布并激活,参与营养物质的消化吸收。小肠中消化酶的活性直接影响机体对营养物质的消化吸收能力[15],其异常改变会导致营养物质利用率降低,进而影响禽类生产性能。本试验中,杜仲籽粕替代豆粕对小肠消化酶活性的影响表现出显著的肠段特异性。胰蛋白酶活性呈现“低促高抑”的变化趋势,可能是在高比例替代下抗营养因子(如胰蛋白酶抑制剂)发挥抑制作用所致。EUSM10、EUSM20和EUSM40组十二指肠脂肪酶活性较CON组显著提高,可能与杜仲籽粕中活性成分(如绿原酸、黄酮类物质)刺激胰腺腺泡分泌脂肪酶有关[16]。伏桂华等[17]研究表明,绿原酸能够促进胃肠道平滑肌收缩,加速食糜排空,同时延长消化酶作用时间,从而提高养分利用率。但与CON组相比,试验组空肠中脂肪酶活性显著降低。有研究指出,高纤维或抗营养因子可能抑制空肠中消化酶活性[18]。相比之下,淀粉酶活性在十二指肠和空肠中均未受到显著影响,可能是由于杜仲籽粕中碳水化合物结构与豆粕相似,未明显改变淀粉消化微环境,或机体通过补偿性机制维持碳水化合物代谢稳态。

3.3 杜仲籽粕替代豆粕对产蛋后期蛋鸡肠道微生物区系的影响

肠道菌群是由真菌、细菌等微生物组成的动态平衡系统,与宿主共生共进化形成稳定生态体系,在宿主免疫、营养吸收、新陈代谢及整体健康中发挥重要作用[19-21]。菌群结构与代谢产物的双向调节,既是维持肠道微生物屏障稳定的关键,也会影响消化道组织形态、小肠消化酶活性等,进而影响饲料转化效率[22]。本试验结果表明,杜仲籽粕替代豆粕使得蛋鸡肠道菌群物种丰度降低,α多样性指数显著下降,试验组与CON组盲肠菌群β多样性存在明显分离,表明杜仲籽粕的添加改变了盲肠微生物结构。与CON组相比,试验组肠道菌群在门水平上呈现显著分化特征。厚壁菌门与拟杆菌门为动物肠道优势菌门,占比通常达90%以上[23-25]。其中,厚壁菌门作为主要碳水化合物代谢菌群,可通过加工膳食纤维产生短链脂肪酸。本试验中,各组间盲肠厚壁菌门相对丰度无显著差异,提示杜仲籽粕与豆粕在能量代谢方面具有相似性,未引起菌群代谢途径显著改变。拟杆菌门可编码酶类参与大多数多糖的消化吸收,拟杆菌属作为其核心功能菌群,与膳食纤维降解及宿主-菌群共代谢产物的合成密切相关[26-27]。本试验结果表明,与CON组相比,试验组盲肠拟杆菌门相对丰度均出现下降,且拟杆菌属相对丰度显著下降,这与Liang等[8]在蛋鸡饲粮中添加杜仲叶提取物后拟杆菌门相对丰度显著降低的研究结果相符。本试验检测结果显示,杜仲籽粕粗纤维含量高于豆粕,因此拟杆菌属相对丰度的下降可能源于饲粮纤维结构的改变或抗营养因子的抑制作用。本试验中,与CON组相比,低替代比例下(EUSM10和EUSM20组)盲肠脱硫杆菌门相对丰度无显著变化,但高替代比例下(EUSM30和EUSM40组)盲肠脱硫杆菌门相对丰度显著提高。脱硫杆菌门中部分菌群可利用短链脂肪酸、含硫氨基酸、无机硫酸盐、硫化多糖和肠道中的氢作为电子供体产生硫化氢,研究表明硫化氢不仅会损伤肠上皮细胞线粒体功能,还可通过激活核因子-κB(NF-κB)通路诱发炎症反应[28]。推测脱硫杆菌门相对丰度的变化可能与高替代比例下杜仲籽粕中硫元素存在形式或其代谢产物破坏硫酸盐还原菌与其他菌群的生态平衡有关。此外,与CON组相比,EUSM10、EUSM20和EUSM40组盲肠奥尔森菌属相对丰度显著提高,该菌属可产生短链脂肪酸,维持肠道健康并调节免疫与炎症[29];EUSM20组盲肠理研菌科RC9肠道群相对丰度显著提高,该菌参与碳水化合物发酵及短链脂肪酸(如丙酸)合成,可调节宿主能量代谢,对肠道健康具有益生作用[29-31];EUSM10组盲肠克里斯滕森菌科R-7群相对丰度显著提高,该菌属参与代谢保护,与肥胖、2型糖尿病等代谢性疾病的发生呈负相关,具有复杂多糖代谢能力,可通过产生短链脂肪酸(如丙酸)和次生胆汁酸调节肠道环境,维持宿主代谢稳态[32-33]

4 结论

本试验条件下,随着杜仲籽粕替代豆粕比例的升高,产蛋后期蛋鸡平均日采食量和产蛋率逐渐降低,干物质和粗脂肪表观利用率提升但粗蛋白质表观利用率下降,肠道微生物物种丰度下降;低比例(≤20%)替代可提高部分有益菌相对丰度,高比例(≥30%)替代则会导致部分条件致病菌相对丰度升高。综合来看,杜仲籽粕等蛋白质替代豆粕的适宜比例为10%。
[1]
高鹏翔, 潘予琮, 蒋林树, 等. 饲用豆粕减量替代技术的应用及新型蛋白质饲料的开发前景[J]. 动物营养学报, 2023, 35(3):1433-1443.

DOI

GAO P X, PAN Y C, JIANG L S, et al. Application of alternative technology for soybean meal reduction for feed and development prospect of new protein feed[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1433-1443. (in Chinese)

DOI

[2]
赵娜. 杜仲籽的化学成分及其生物活性研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2020.

ZHAO N. Studies on chemical constituents and bioactivities of Eucommia ulmoides seeds[D]. Master’s Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[3]
马蓁, 谢马辉, 蔡雪刁, 等. 杜仲籽油粕营养成分研究[J]. 西北农林科技大学学报(自然科学版), 2016, 44(1):206-210.

MA Z, XIE M H, CAI X D, et al. Nutritional constituents in oil meal of Eucommia ulmoides seed[J]. Journal of Northwest A&F University(Natural Science Edition), 2016, 44(1):206-210. (in Chinese)

[4]
CHEN F, ZHANG H, ZHAO N, et al. Effect of chlorogenic acid on intestinal inflammation,antioxidant status,and microbial community of young hens challenged with acute heat stress[J]. Animal Science Journal, 2021, 92(1):e13619.

DOI

[5]
SCICUTELLA F, MANNELLI F, DAGHIO M, et al. Polyphenols and organic acids as alternatives to antimicrobials in poultry rearing:a review[J]. Antibiotics, 2021, 10(8):1010.

DOI

[6]
POPOVA A, MIHAYLOVA D. Antinutrients in plant-based foods:a review[J]. The Open Biotechnology Journal, 2019, 13:68-76.

DOI

[7]
JOHNSON I T, GEE J M, PRICE K, et al. Influence of saponins on gut permeability and active nutrient transport in vitro[J]. The Journal of Nutrition, 1986, 116(11):2270-2277.

DOI

[8]
LIANG X X, FU Y W, NIU K M, et al. Dietary Eucommia ulmoides leaf extract improves laying performance by altering serum metabolic profiles and gut bacteria in aged laying hens[J]. Animal Nutrition, 2023, 15:307-319.

DOI

[9]
LUSHCHAK V I. Symphony of digestion:coordinated host-microbiome enzymatic interplay in gut ecosystem[J]. Biomolecules, 2025, 15(8):1151.

DOI

[10]
CHOI J, KIM W K. Dietary application of tannins as a potential mitigation strategy for current challenges in poultry production:a review[J]. Animals, 2020, 10(12):2389.

DOI

[11]
WANG Y, JIA X Y, GUO Z X, et al. Effect of dietary soybean saponin Bb on the growth performance,intestinal nutrient absorption,morphology,microbiota,and immune response in juvenile Chinese soft-shelled turtle (Pelodiscus sinensis)[J]. Frontiers in Immunology, 2022, 13:1093567.

DOI

[12]
MAHARJAN P, RAHIMI A, HARDING K L, et al. Effects of full-fat high-oleic soybean meal in layer diets on nutrient digestibility and egg quality parameters of a white laying hen strain[J]. Poultry Science, 2023, 102(4):102486.

DOI

[13]
黄林, 丁浩轩, 冯杰. 杜仲提取物对黄羽肉鸡生长性能及养分消化利用的影响[J]. 中国畜牧杂志, 2020, 56(7):144-149.

HUANG L, DING H X, FENG J. Effects of Eucommia ulmoides Oliv. extract on growth performance and nutrient digestion and utilization of yellow feather broilers[J]. Chinese Journal of Animal Science, 2020, 56(7):144-149. (in Chinese)

[14]
RIDEAU N, NITZAN Z, MONGIN P. Activities of amylase,trypsin and lipase in the pancreas and small intestine of the laying hen during egg formation[J]. British Poultry Science, 1983, 24(1):1-9.

DOI

[15]
MIAO J J, SONG K, ZHANG X Q, et al. Effects of lipoic acid on performance,slaughter performance,intestinal digestive enzymes and apparent digestibility of nutrients in heat-stressed broilers[J]. Tropical Animal Health and Production, 2025, 57(2):101.

DOI

[16]
ROCHA S, PROENÇA C, ARAÚJO A N, et al. Flavonoids as potential modulators of pancreatic lipase catalytic activity[J]. Pharmaceutics, 2025, 17(2):163.

DOI

[17]
伏桂华, 石英, 王守志. 绿原酸对黄河鲤鱼生长性能、非特异性免疫功能和肌肉品质的影响[J]. 黑龙江畜牧兽医, 2018(20):179-182.

FU G H, SHI Y, WANG S Z. The effect of chlorogenic acid on the growth performance,non-specific immune property and meat quality of Cyprinus carpio haematoperus[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(20):179-182. (in Chinese)

[18]
PÉREZ DE NANCLARES M, TRUDEAU M P, HANSEN J Ø, et al. High-fiber rapeseed co-product diet for Norwegian landrace pigs:effect on digestibility[J]. Livestock Science, 2017, 203:1-9.

DOI

[19]
HSIEH C L, YEN G C. Antioxidant actions of du-zhong (Eucommia ulmoides Oliv.) toward oxidative damage in biomolecules[J]. Life Sciences, 2000, 66(15):1387-1400.

DOI

[20]
HILDEBRAND F, NGUYEN T L A, BRINKMAN B, et al. Inflammation-associated enterotypes,host genotype,cage and inter-individual effects drive gut microbiota variation in common laboratory mice[J]. Genome Biology, 2013, 14(1):R4.

[21]
MARCHESI J R, ADAMS D H, FAVA F, et al. The gut microbiota and host health:a new clinical frontier[J]. Gut, 2016, 65(2):330-339.

DOI

[22]
APAJALAHTI J, VIENOLA K. Interaction between chicken intestinal microbiota and protein digestion[J]. Animal Feed Science and Technology, 2016, 221(Pt B):323-330.

DOI

[23]
LEI Y, ZHANG K, GUO M M, et al. Exploring the spatial-temporal microbiota of compound stomachs in a pre-weaned goat model[J]. Frontiers in Microbiology, 2018, 9:1846.

DOI PMID

[24]
LI H, ZHOU R, ZHU J X, et al. Environmental filtering increases with elevation for the assembly of gut microbiota in wild pikas[J]. Microbial Biotechnology, 2019, 12(5):976-992.

DOI PMID

[25]
MA L, MENG N, LIU B, et al. Yolk color and lipid oxidation of the eggs of commercial white layers fed diets supplemented with vegetable oils[J]. Molecules, 2022, 27(18): 5924.

DOI

[26]
MARTENS E C, LOWE E C, CHIANG H, et al. Recognition and degradation of plant cell wall polysaccharides by two human gut symbionts[J]. PLoS Biology, 2011, 9(12):e1001221.

DOI

[27]
SUN B S, HOU L Y, YANG Y. The development of the gut microbiota and short-chain fatty acids of layer chickens in different growth periods[J]. Frontiers in Veterinary Science, 2021, 8:666535.

DOI

[28]
ZHOU H Y, HUANG D D, SUN Z T, et al. Effects of intestinal Desulfovibrio bacteria on host health and its potential regulatory strategies:a review[J]. Microbiological Research, 2024, 284:127725.

DOI

[29]
ROWLAND I, GIBSON G, HEINKEN A, et al. Gut microbiota functions:metabolism of nutrients and other food components[J]. European Journal of Nutrition, 2018, 57(1):1-24.

[30]
TAVELLA T, RAMPELLI S, GUIDARELLI G, et al. Elevated gut microbiome abundance of Christensenellaceae,Porphyromonadaceae and Rikenellaceae is associated with reduced visceral adipose tissue and healthier metabolic profile in Italian elderly[J]. Gut Microbes, 2021, 13(1):1880221.

DOI

[31]
LIN H, MENG L P, SUN Z Z, et al. Yellow wine polyphenolic compound protects against doxorubicin-induced cardiotoxicity by modulating the composition and metabolic function of the gut microbiota[J]. Circulation:Heart Failure, 2021, 14(10):e008220.

DOI

[32]
GOODRICH J K, WATERS J L, POOLE A C, et al. Human genetics shape the gut microbiome[J]. Cell, 2014, 159(4):789-799.

DOI PMID

[33]
MAZIER W, LE CORF K, MARTINEZ C, et al. A new strain of Christensenella minuta as a potential biotherapy for obesity and associated metabolic diseases[J]. Cells, 2021, 10(4):823.

DOI

Outlines

/