RESEARCH PAPER

Mechanism of Hesperidin Alleviating Intestinal Mucosal Damage in Weaned Piglets Based on Network Pharmacology, Molecular Docking and Molecular Dynamics Simulation

  • ZOU Lijun , 1, 2 ,
  • LI Sicheng 1 ,
  • YUE Jieyu 1 ,
  • SI Kunjie 2 ,
  • YIN Jia 2
Expand
  • 1 Laboratory of Basic Biology, Hunan First Normal University, Changsha 410205, China
  • 2 Hunan Provincial Key Laboratory of Animal Intestinal Function and Regulation, Hunan Normal University, Changsha 410081, China

ZOU Lijun, associate professor, E-mail:

Received date: 2025-10-16

  Online published: 2026-05-14

Abstract

The present study aimed to explore the mechanism of hesperidin alleviating intestinal mucosal damage in weaned piglets used network pharmacology, molecular docking and molecular dynamics simulation. The targets of hesperidin were screened through the TCMSP, Pharm Mapper and Swiss Target Prediction databases, and intersected with intestinal mucosal damage in weaned piglets associated targets obtained from GeneCards, OMIM and DrugBank databases to obtain common target set. A protein-protein interaction network was constructed to screen core targets, followed by GO functional and KEGG pathway enrichment analyses of intersecting targets through DAVID database. The molecular docking and molecular dynamics simulations were conducted with AutoDock Tools and GROMACS to analyze binding patterns and dynamic interactions between hesperidin and core targets, respectively. Based on the hydrogen peroxide (H2O2) induced oxidative stress model in IPEC-J2 cells, the pharmacological effects and mechanisms of hesperidin were validated using CCK-8 assay and real-time quantitative PCR. The results showed that there were 46 intersection targets of hesperidin for alleviating intestinal mucosal damage in weaned piglets. Among these, six core targets were identified: epidermal growth factor receptor (EGFR), B-cell lymphoma 2 (BCL2), fibronectin 1 (FN1), prostaglandin G/H synthase 2 (PTGS2), caspase 3 (CASP3) and estrogen receptor 1 (ESR1). The GO functional and KEGG pathway enrichment analysis showed that these targets involved in pathways in cancer, advanced glycation end products-receptor of advanced glycation end products signaling pathway in diabetes complications, endocrine resistance, apoptosis and tumor necrosis factor signaling pathway, etc. Molecular docking revealed that hesperidin could stably bind to core target proteins through intermolecular interactions including hydrogen bonds, Van Der Waals forces and carbon-hydrogen bonds. Furthermore, molecular dynamics simulations confirmed that hesperidin formed stable dynamic binding conformations with BCL2 and EGFR. The cell experiment results indicated that compared with the oxidative stress group, 400 μmol/L hesperidin significantly up-regulated the mRNA relative expression levels of BCL2, EGFR and FN1 in IPEC-J2 cells (P<0.05), while down-regulated the mRNA relative expression level of PTGS2 (P<0.05), thereby significantly increased the cell viability (P<0.05). In conclusion, the hesperidin may alleviate intestinal mucosal damage in weaned piglets through synergistic regulation of multi-target networks involving apoptosis, proliferation and inflammatory responses, which provided a theoretical basis for its application as a green feed additive.

Cite this article

ZOU Lijun , LI Sicheng , YUE Jieyu , SI Kunjie , YIN Jia . Mechanism of Hesperidin Alleviating Intestinal Mucosal Damage in Weaned Piglets Based on Network Pharmacology, Molecular Docking and Molecular Dynamics Simulation[J]. Chinese Journal of Animal Nutrition, 2026 , 38(5) : 3715 -3729 . DOI: 10.12418/CJAN2026.298

仔猪早期断奶是生猪养殖过程的一个重要环节,容易诱发仔猪出现精神状况不佳、采食量和抗病力下降、生长缓慢、肠道菌群失衡以及腹泻为主要特征的“早期断奶综合征”[1]。为防控上述疾病并提升仔猪生长性能,养殖场普遍会在饲粮中加入抗生素类生长促进剂。为应对抗生素残留和细菌耐药性增加的问题,农业农村部第194号公告要求,除中草药类外,饲料生产企业停止生产含有促生长类药物饲料添加剂的商品饲料。研究表明,黄酮类化合物可通过清除自由基、调节关键酶活性及促进细胞增殖等多种途径,协同维护肠黏膜完整性及生理功能,并表现出抗炎、止泻等多重药理活性[2-3]。在此背景下,以中药黄酮类提取物为代表的安全性高、无残留的替抗方案,正推动动物营养学研究迎来新的范式转移[4]
橙皮苷(hesperidin,HSD)作为一种广泛存在于柑橘属植物的天然黄酮类化合物,具有抗炎、抗氧化及免疫调节等多种药理活性[5-6]。研究发现,橙皮苷在动物肠道疾病模型中展现出显著的保护作用[7];在饲粮中添加橙皮苷可通过提高断奶仔猪肠道抗氧化酶活性、减轻氧化损伤来缓解肠道黏膜屏障损伤,进而改善生长性能[8-9];在肠道炎症模型小鼠中,橙皮苷能上调紧密连接蛋白表达,修复肠道机械屏障[10];同时,橙皮苷能调控肠道免疫(促进T细胞应答与免疫球蛋白分泌)和优化肠道菌群结构(促进乳酸杆菌增殖,抑制螺杆菌增殖),维护肠道稳态[11]。现有研究主要关注橙皮苷对畜禽生长性能和肠道健康的宏观效应,而在分子层面的作用机理尚需深入阐明。网络药理学作为系统生物学与多向药理学交叉的新兴学科,通过构建“药物-靶点-通路”互作网络,系统解析药物多靶点作用机制,有助于推动畜禽养殖业从经验驱动到数据驱动的根本性转变[12]。因此,本研究通过构建“药物-疾病”靶蛋白互作网络,深入解析橙皮苷缓解断奶仔猪肠道黏膜损伤的核心靶点和信号通路。通过分子对接和分子动力学模拟验证橙皮苷与核心靶点的结合活性和构象稳定性,并结合体外细胞试验阐明其调控靶基因表达干预肠上皮细胞氧化损伤的作用机制;旨在为橙皮苷作为新型饲料添加剂的开发提供理论依据,并为饲用抗生素替代策略提供新的研究思路与方法学借鉴。

1 材料与方法

1.1 橙皮苷潜在作用靶点预测及收集

首先通过TCMSP数据库(https://tcmsp-e.com/tcmsp.php)检索橙皮苷的已知靶点,并获取其mol2格式的分子结构文件。随后,将该分子结构文件导入Pharm Mapper数据库(https://pubchem.ncbi.nlm.nih.gov),以预测橙皮苷的潜在作用靶点。同时,从PubChem数据库(https://pubchem.ncbi.nlm.nih.gov)中获取橙皮苷的SMILES分子表达式,并将其导入Swiss Target Prediction数据库(http://www.swisstargetprediction.ch),进一步预测其生物活性靶点。最后,对TCMSP、Pharm Mapper和Swiss Target Prediction数据库获得的潜在作用靶点进行整合,合并重复的靶点,构建橙皮苷的综合靶点集。

1.2 橙皮苷治疗肠道黏膜损伤潜在靶点收集

在GeneCards(https://www.genecards.org)、OMIM(http://www.omim.org)、Druybank(https://www.drugbank.ca)、PharmGKB(https://www.pharmgkb.org)和Disgenet数据库(http://www.disgenet.org)中以“intestinal mucosal damage in weaned piglets”为检索词获取疾病相关靶点,以相关性评分(relevance score)>10为阈值筛选靶点,将靶点整合去重后排序。通过Venny 2.1.0在线平台(https://bioinfogp.cnb.csic.es/tools/venny)构建橙皮苷作用靶点和断奶仔猪肠道黏膜损伤疾病靶点的韦恩图,获得药物-疾病交集靶点。

1.3 药物-疾病交集靶点蛋白质-蛋白质相互作用(protein-protein interaction,PPI)网络图的构建及核心靶点筛选

将橙皮苷和断奶仔猪肠道黏膜损伤的共同靶点导入String平台(https://string-db.org),物种设置为“Sus scrofa”,以最低交互分数(minimum required interaction score)≥0.4构建PPI网络。将构建的PPI网络导入Cytoscape 3.10.0软件,并利用Network Analysis工具计算网络拓扑参数,创建可视化显示。基于网络拓扑学原理,对网络节点进行综合分析;首先排除中间中心度(betweenness)、接近中心度(closeness)和度值(degree)任意指标为0的节点,随后筛选三者均高于全网平均值的节点,并将其确定为核心靶点。

1.4 GO功能和KEGG通路富集分析

将橙皮苷和断奶仔猪肠道黏膜损伤交集靶点导入DAVID数据库(https://davidbioinformatics.nih.gov/summary.jsp),设置序列属性为“OFFICIAL_GENE_SYMBOL”,物种类型为“Sus scrofa”,进行GO功能和KEGG通路富集分析。其中,GO功能分析包括分子功能(molecular function,MF)、生物过程(biological process,BP)和细胞组分(cellular component,CC);按P<0.05筛选显著条目,分别选取分子功能、生物过程和细胞组分3个类别中前15项绘制柱形图。同时,基于KEGG通路富集分析结果,按P<0.05筛选前20条显著通路,依据其关联靶点绘制圈图。所有可视化图表均通过微生信在线平台(http://www.bioinformatics.com.cn)生成。

1.5 橙皮苷与核心靶点分子对接验证

通过ChemDraw软件构建橙皮苷的三维(3D)结构,使其能量最小化后保存为mol2格式;将核心靶点输入蛋白质结构数据库(protein data bank,PDB)(https://www.rcsb.org)中,以PDB格式下载核心靶点的3D结构;采用PyMOL软件对靶蛋白进行加氢、去水处理,并基于AutoDock Tools 1.5.7软件将橙皮苷与靶蛋白的格式均转为pdbpt格式;运用AutoDock Vina软件计算结合能,进行分子对接;选取结合能最低的对接构象作为最稳定的结合模式,PyMOL软件进行可视化处理,展示结合显著性最高的核心靶点,进一步揭示橙皮苷与靶蛋白的最佳结合方式、结合强度以及相互作用细节。

1.6 橙皮苷与核心靶点分子动力学模拟分析

为验证分子对接结果,参照Vieira等[13]的运算步骤在Ubuntu 20.04系统中采用GROMACS 2023软件对橙皮苷-靶蛋白复合物进行分子动力学模拟。具体步骤如下:首先,构建目标蛋白的拓扑结构,利用ACPYPE(antechamber python parser interface)工具生成配体橙皮苷的拓扑文件,将二者整合构建复合物体系。将该体系置于立方体周期盒子中心(盒子边缘距离复合物至少1.0 nm),分别采用AMBER99SB-ILDN力场和具有3点的可转移分子间势(transferable interatomic potential-3 points,TIP3P)水模型进行计算和体系溶剂化,并通过添加适量钠离子(Na+)或氯离子(Cl-)离子以中和体系净电荷。随后,对体系进行能量最小化(1 000步,最陡下降法)以消除原子间不合理接触。继而,在正则系综(恒定粒子数、体积和温度)与等温等压系综(恒定粒子数、压力和温度)下分步进行平衡,其中温度通过V-rescale方法控制在300 K(1 K=-272.15 ℃),压力通过Parrinello-Rahman方法维持在1 bar(1 bar=100 kPa)。每个体系模拟时长为100 ns,积分步长为2 fs,过程中使用线性约束求解器(linear constraint solver,LINCS)算法约束所有化学键的氢原子键长。模拟轨迹每10 ps保存1次。模拟结束后,对轨迹进行周期性边界条件校正,并利用gmx_sham命令计算体系在不同构象下的自由能分布,以定量评估橙皮苷和核心靶点的相互作用强度。

1.7 体外细胞试验验证

1.7.1 细胞培养

将猪小肠上皮细胞(IPEC-J2细胞)在添加10%胎牛血清的高糖DMEM培养基中培养。培养条件为37 ℃、95%空气和5%二氧化碳(CO2)、相对饱和湿度。细胞采用0.25%胰酶常规消化并进行传代。

1.7.2 细胞增殖检测

将对数生长期的IPEC-J2细胞以5 000个/孔的密度接种于96孔板。培养24 h后,分别更换为含不同浓度(0、100、200、400、800 μmol/L)橙皮苷(货号:HY-15337,纯度:98.14%,美国MedChemExpress公司)的培养液,分别记为HSD-0(氧化应激组)、HSD-100、HSD-200、HSD-400、HSD-800组,并设置空白组(Blank组),每组8个复孔。继续培养24 h后,除空白组外,其他每孔加入含1 000 μmol/L过氧化氢(H2O2)的培养基处理4 h,随后采用CCK-8法测定各孔吸光度值。

1.7.3 靶基因mRNA相对表达水平测定

采用RNAiso Plus试剂提取细胞总RNA,使用Evo M-MLV反转录试剂盒合成cDNA。采用SYBR Green Pro Tag Hs预混型qPCR试剂盒在ABI QuantStudio 5 RT-qPCR平台进行扩增,反应条件为:95 ℃预变性10 min;95 ℃变性20 s,55 ℃退火20 s,72 ℃延伸20 s,共进行40个循环。目的基因的mRNA相对表达水平采用2-ΔΔCt法计算,以β-肌动蛋白(β-actin)作为内参基因,试验重复3次。引物由长沙擎科生物科技有限公司合成,引物序列见表1
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
产物长度
Product length/bp
β-肌动蛋白
β-actin
F: AGTTGAAGGTGGTCTCGTGG
R: TGCGGGACATCAAGGAGAAG
NM_001444420.1 216
表皮生长因子受体
EGFR
F: GGACAACCCAGACTACCAGC
R: GGCTGTCGGGACTATGTAGC
NM_214007.1 217
纤维连接蛋白1
FN1
F: GAAGTGACGGACGTGAAGGT
R: GGTCACCATGACGGTTGAGT
XM_003133642.5 300
B淋巴细胞瘤2
BCL2
F: GGTGAACTGGGGGAGGATTG
R: GTGCCGGTTCAGGTACTCAG
XM_021099593.1 130
前列腺素内过氧化物合酶2
PTGS2
F: AGACAGCATAAACTGCGCCT
R: CATCATCAGACCAGGCACCA
NM_214321.1 183
胱天蛋白酶3
CASP3
F: TTGAGACGGACAGTGGGACT
R: CCGTCCTTTGAATTTCGCCAG
NM_214131.1 121
雌激素受体1
ESR1
F: GGCCAAGCCCTCTCTTGATT
R: AGGATCTCTAGCCAGGCACA
NM_214220.1 286

1.8 统计分析

采用SPSS 26.0软件对试验数据进行单因素方差分析(one-way ANOVA),组间差异用Duncan氏法进行多重比较,结果用平均值±标准差表示。P<0.05为差异显著。

2 结果与分析

2.1 橙皮苷和断奶仔猪肠道黏膜损伤靶点预测及筛选

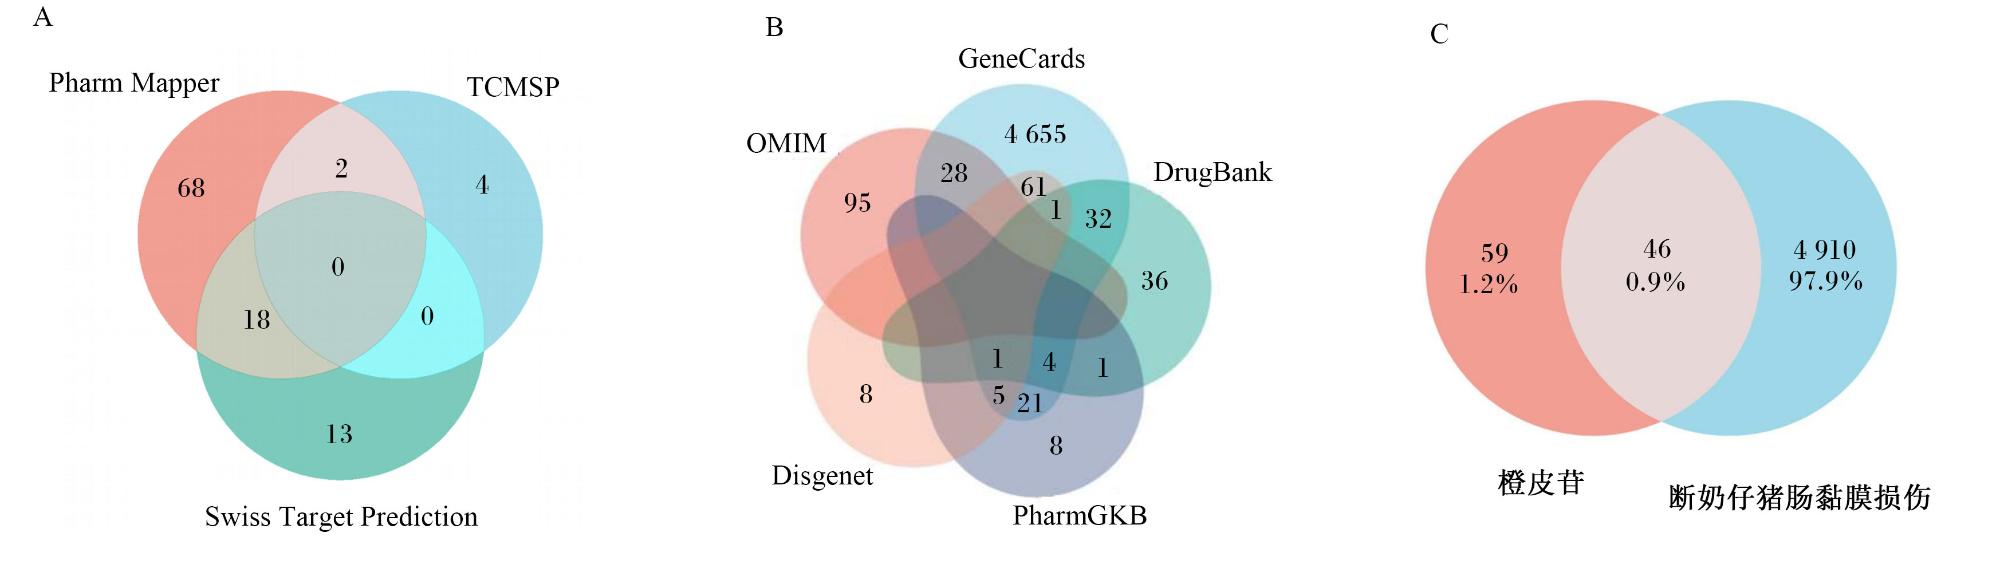
通过TCMSP、PharmMapper和Swiss Target Prediction数据库筛选橙皮苷作用靶点,并经Universal Protein ID(Uniprot ID)数据库(https://www.uniprot.org)将靶点名称统一校正为基因名,合并去重后获得105个潜在靶点(图1-A)。从GeneCards、OMIM、DrugBank、Disgenet和PharmGKB等数据库中检索并整合与断奶仔猪肠道黏膜损伤相关的靶点,共得到4 956个疾病靶点(图1-B)。将上述橙皮苷作用靶点与疾病相关靶点进行映射分析,获得46个共同靶点,并通过Venny 2.1.0平台绘制韦恩图(图1-C),直观展示了橙皮苷与断奶仔猪肠道黏膜损伤之间的关联靶点。
图1 橙皮苷缓解断奶仔猪肠道黏膜损伤的靶点可视化筛选

A:橙皮苷靶点基因并集韦恩图 Venn diagram of hesperidin target gene concatenation;B:断奶仔猪肠道黏膜损伤靶点基因并集韦恩图 Venn diagram of intestinal mucosal damage in weaned piglets target gene concatenation;C:橙皮苷与断奶仔猪肠道黏膜损伤共同靶点韦恩图 Venn diagram of common target of hesperidin and intestinal mucosal damage in weaned piglets。

Fig.1 Visual screen of targets for hesperidin alleviating intestinal mucosal damage in weaned piglets

2.2 橙皮苷-断奶仔猪肠道黏膜损伤交集靶点PPI网络

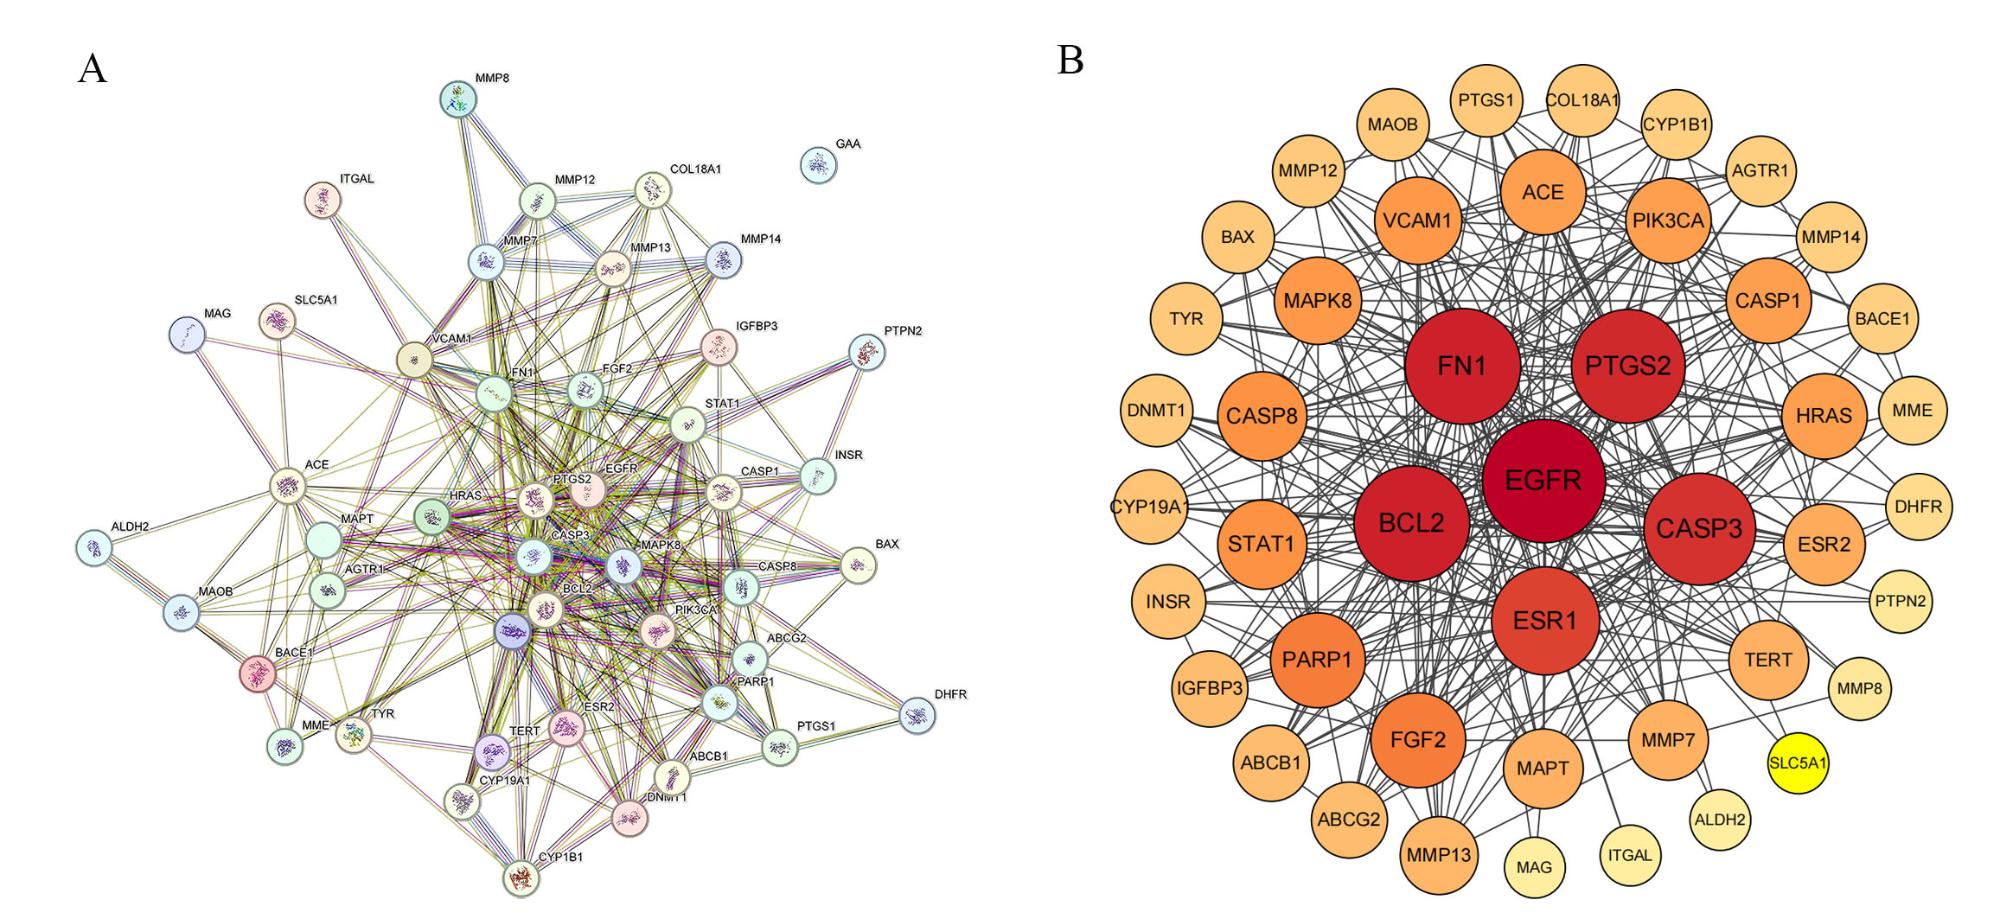
将46个交集靶点导入String平台,获取PPI网路图(图2-A)。网络拓扑分析显示(图2-B),该网络包含46个节点(node)和283条边(edge),整体连接度较高(平均度值=12.3)且集聚性强(全局聚类系数=0.676)。节点大小与颜色深度直观反映其网络重要性与关联度。根据拓扑参数中间中心度>0.020 2、接近中心度>0.590 7、度值>14筛选,最终获得6个高置信度核心靶点,分别为表皮生长因子受体(EGFR)、纤维连接蛋白1(FN1)、B淋巴细胞瘤2(BCL2)、前列腺素内过氧化物合酶2(PTGS2)、胱天蛋白酶3(CASP3)和雌激素受体1(ESR1)。橙皮苷缓解断奶仔猪肠道黏膜损伤的核心靶点及其拓扑学特征见表2
图2 橙皮苷缓解断奶仔猪肠道黏膜损伤靶点PPI网络图

仅注释核心靶点 only annotated core targets。EGFR:表皮生长因子受体 epidermal growth factor receptor;FN1:纤维连接蛋白1 fibronectin;BCL2:B淋巴细胞瘤2 B-cell lymphoma 2;PTGS2:前列腺素内过氧化物合酶2 prostaglandin G/H synthase 2;CASP3:胱天蛋白酶3 caspase 3;ESR1:雌激素受体1 estrogen receptor 1。图4同the same as Fig.4

Fig.2 PPI network diagram of targets for hesperidin alleviating intestinal mucosal damage in weaned piglets

表2 橙皮苷缓解断奶仔猪肠道黏膜损伤的核心靶点及其拓扑学特征

Table 2 Core targets for hesperidin alleviating intestinal mucosal damage in weaned piglets and its topological characteristics

核心靶点
Core targets
Uniprot编号
Uniprot ID
中间中心度
Betweenness
接近中心度
Closeness
度值
Degree
表皮生长因子受体 EGFR P00533 0.165 6 0.830 2 35
纤维连接蛋白1 FN1 P02751 0.145 5 0.771 9 31
B淋巴细胞瘤2 BCL2 P10415 0.077 3 0.771 9 31
前列腺素内过氧化物合酶2 PTGS2 P35354 0.094 3 0.758 6 30
胱天蛋白酶3 CASP3 P42574 0.054 6 0.745 8 29
雌激素受体1 ESR1 P03372 0.052 1 0.721 3 27

2.3 GO功能和KEGG通路富集分析

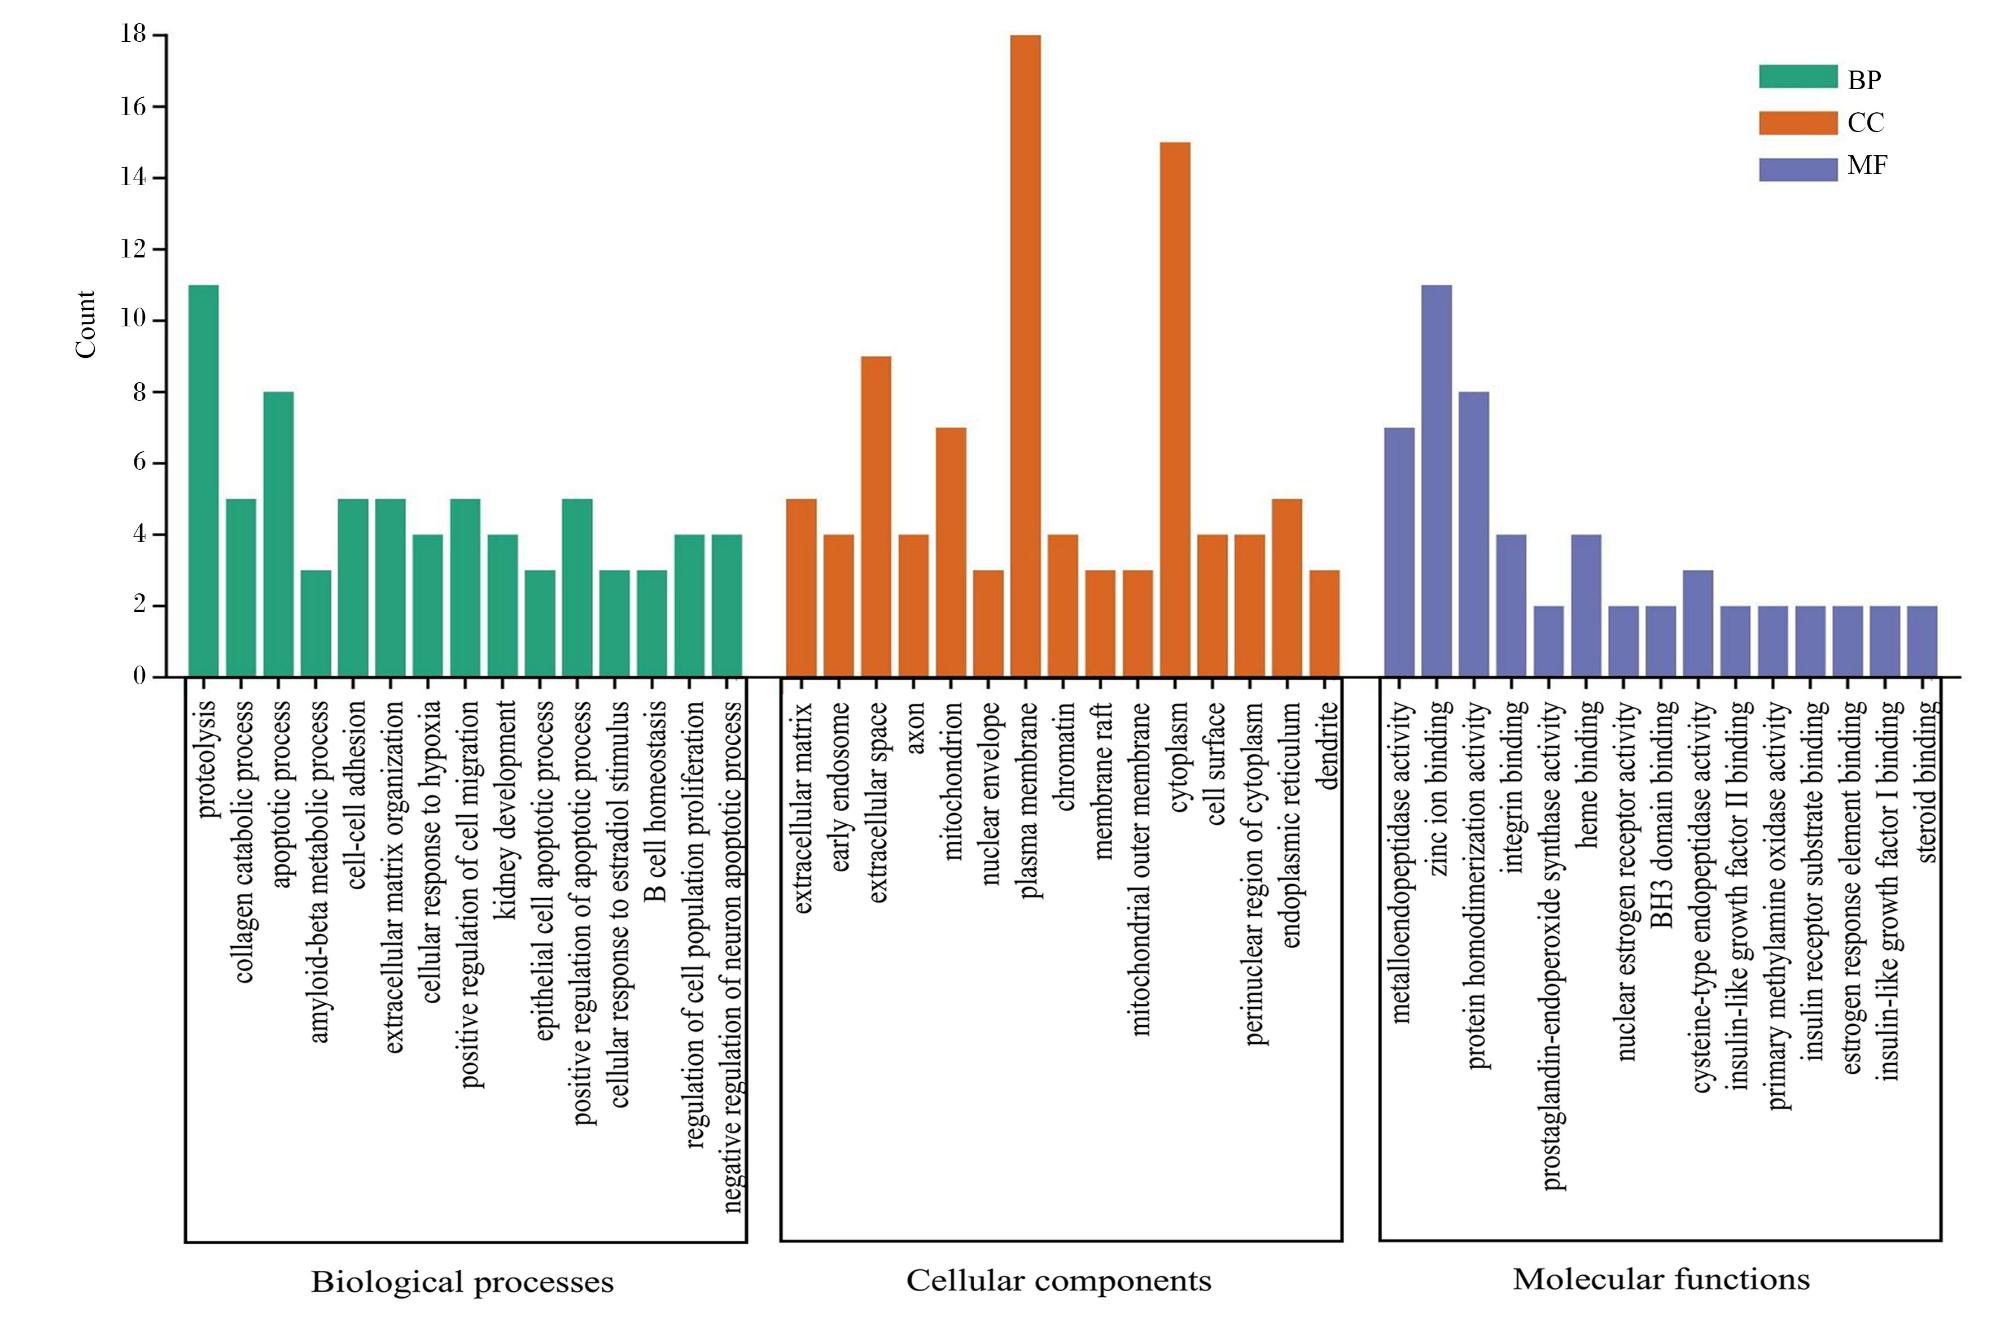
运用DAVID数据库对交集靶点进行GO功能和KEGG通路富集分析,以P<0.05为显著性阈值。GO功能富集分析结果显示,生物过程94条,细胞组分16条,分子功能25条;选取各类别前15个条目分析结果。如图3所示,在生物过程方面,靶点显著富集于蛋白水解、胶原分解代谢过程、细胞凋亡过程及细胞间黏附等;在细胞组分方面,靶点显著富集于质膜、细胞质、细胞外间隙及线粒体等;在分子功能方面,靶点显著富集于锌离子结合、蛋白质同源二聚体活性、金属内肽酶活性及整合素结合等。
图3 橙皮苷缓解断奶仔猪肠道黏膜损伤靶点GO条目柱形图

仅注释主要的GO功能 only annotated main GO function。Count:计数;Biological processes:生物过程;Cellular components:细胞组分;Molecular functions:分子功能;proteolysis:蛋白水解;collagen catabolic process:胶原分解代谢过程;apoptotic process:细胞凋亡过程;cell-cell adhesion:细胞间黏附;extracellular matrix organization:细胞外基质组织;cellular response to hypoxia:缺氧的细胞反应;positive regulation of cell migration:细胞迁移的正向调控;kidney development:肾脏发育;positive regulation of apoptotic process:凋亡过程的正向调控;regulation of cell population proliferation:细胞群体增殖调控;negative regulation of neuron apoptotic process:神经元凋亡过程的负调控;extracellular matrix:细胞外基质;early endosome:早期内体;extracellular space:细胞外间隙;mitochondrion:线粒体;plasma membrane:质膜;cytoplasm:细胞质;endoplasmic reticulum:内质网;metalloendopeptidase activity:金属内肽酶活性;zinc ion binding:锌离子结合 protein homodimerization activity:蛋白质同源二聚体活性;integrin binding:整合素结合。

Fig.3 Bar chart of targets GO entries for hesperidin alleviating intestinal mucosal damage in weaned piglets

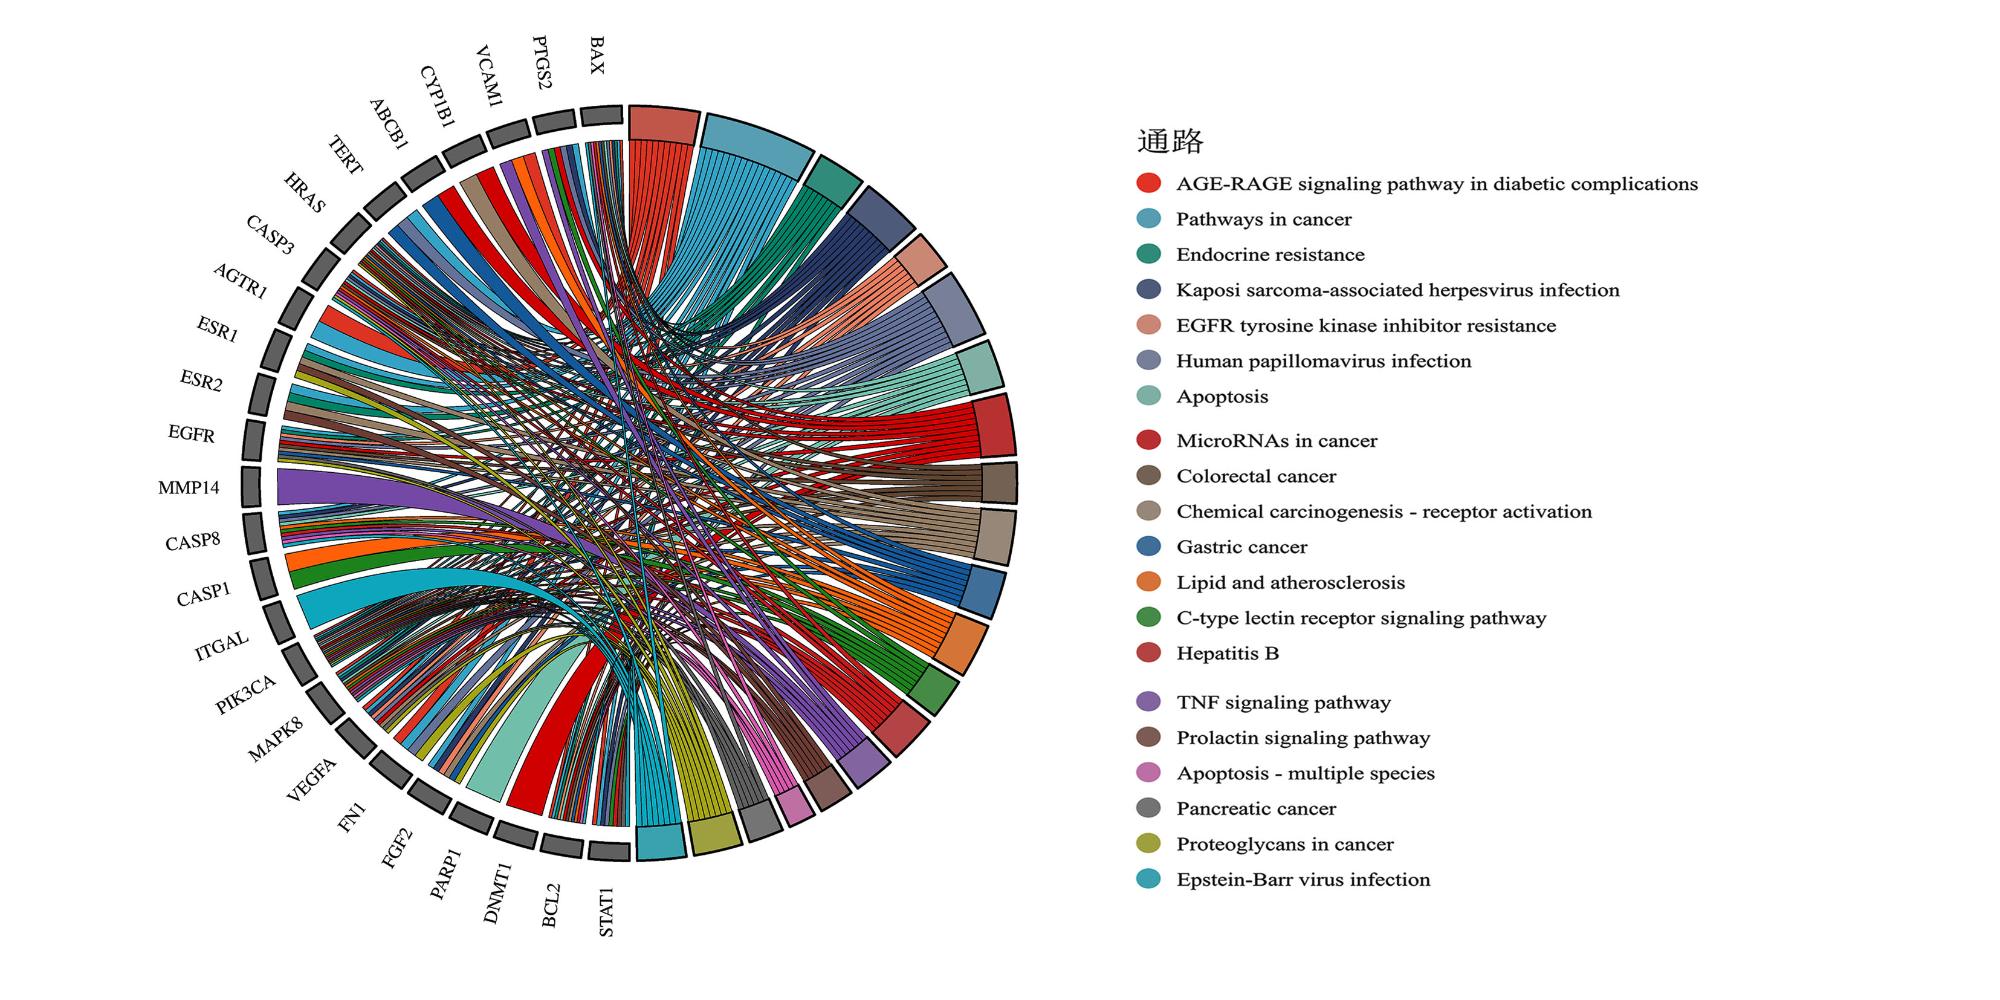
KEGG富集分析结果显示,交集靶点共富集到106条通路,主要涉及糖尿病并发症晚期糖基化产物-晚期糖基化终末产物受体(AGE-RAGE)信号通路、癌症通路、内分泌抵抗、Kaposi肉瘤相关疱疹病毒感染、表皮生长因子受体酪氨酸激酶抑制剂耐药性、细胞凋亡和肿瘤坏死因子(TNF)信号通路等。选取显著性最高的20条通路绘制圈图,直观展示通路与靶点的对应关系。如图4所示,橙皮苷缓解肠道黏膜损伤的作用靶点显著富集于癌症通路(靶点占比38%)和糖尿病并发症AGE-RAGE信号通路(靶点占比24%);此外,富集到细胞凋亡和TNF信号通路的靶点占比分别为18%和16%。
图4 橙皮苷缓解肠道黏膜损伤靶点的KEGG通路富集分析结果

AGE-RAGE signaling pathway in diabetic complications:糖尿病并发症晚期糖基化产物-晚期糖基化终末产物受体信号通路;Pathways in cancer:癌症通路;Endocrine resistance:内分泌抵抗;Kaposi sarcoma-associated herpesvirus infection:Kaposi肉瘤相关疱疹病毒感染;EGFR tyrosine kinase inhibitor resistance: 表皮生长因子受体酪氨酸激酶抑制剂耐药性;Human papillomavirus infection:人乳头瘤病毒感染;Apoptosis:细胞凋亡;MicroRNAs in cancer:癌症微小RNA;Colorectal cancer:结直肠癌;Chemical carcinogenesis-receptor activation:化学致癌-受体激活;Gastric cancer:胃癌;Lipid and atherosclerosis:脂质和动脉粥样硬化;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;Hepatitis B:乙型肝炎;TNF signaling pathway:肿瘤坏死因子信号通路;Prolactin signaling pathway:催乳素信号通路;Apoptosis-multiple species:多物种细胞凋亡;Pancreatic cancer:胰腺癌;Proteoglycans in cancer:癌症蛋白多糖;Epstein-Barr virus infection:EB病毒感染。

Fig.4 Results of targets KEGG pathway enrichment analysis for hesperidin alleviating intestinal mucosal damage in weaned piglets

2.4 靶蛋白与橙皮苷分子对接分析

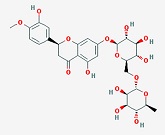
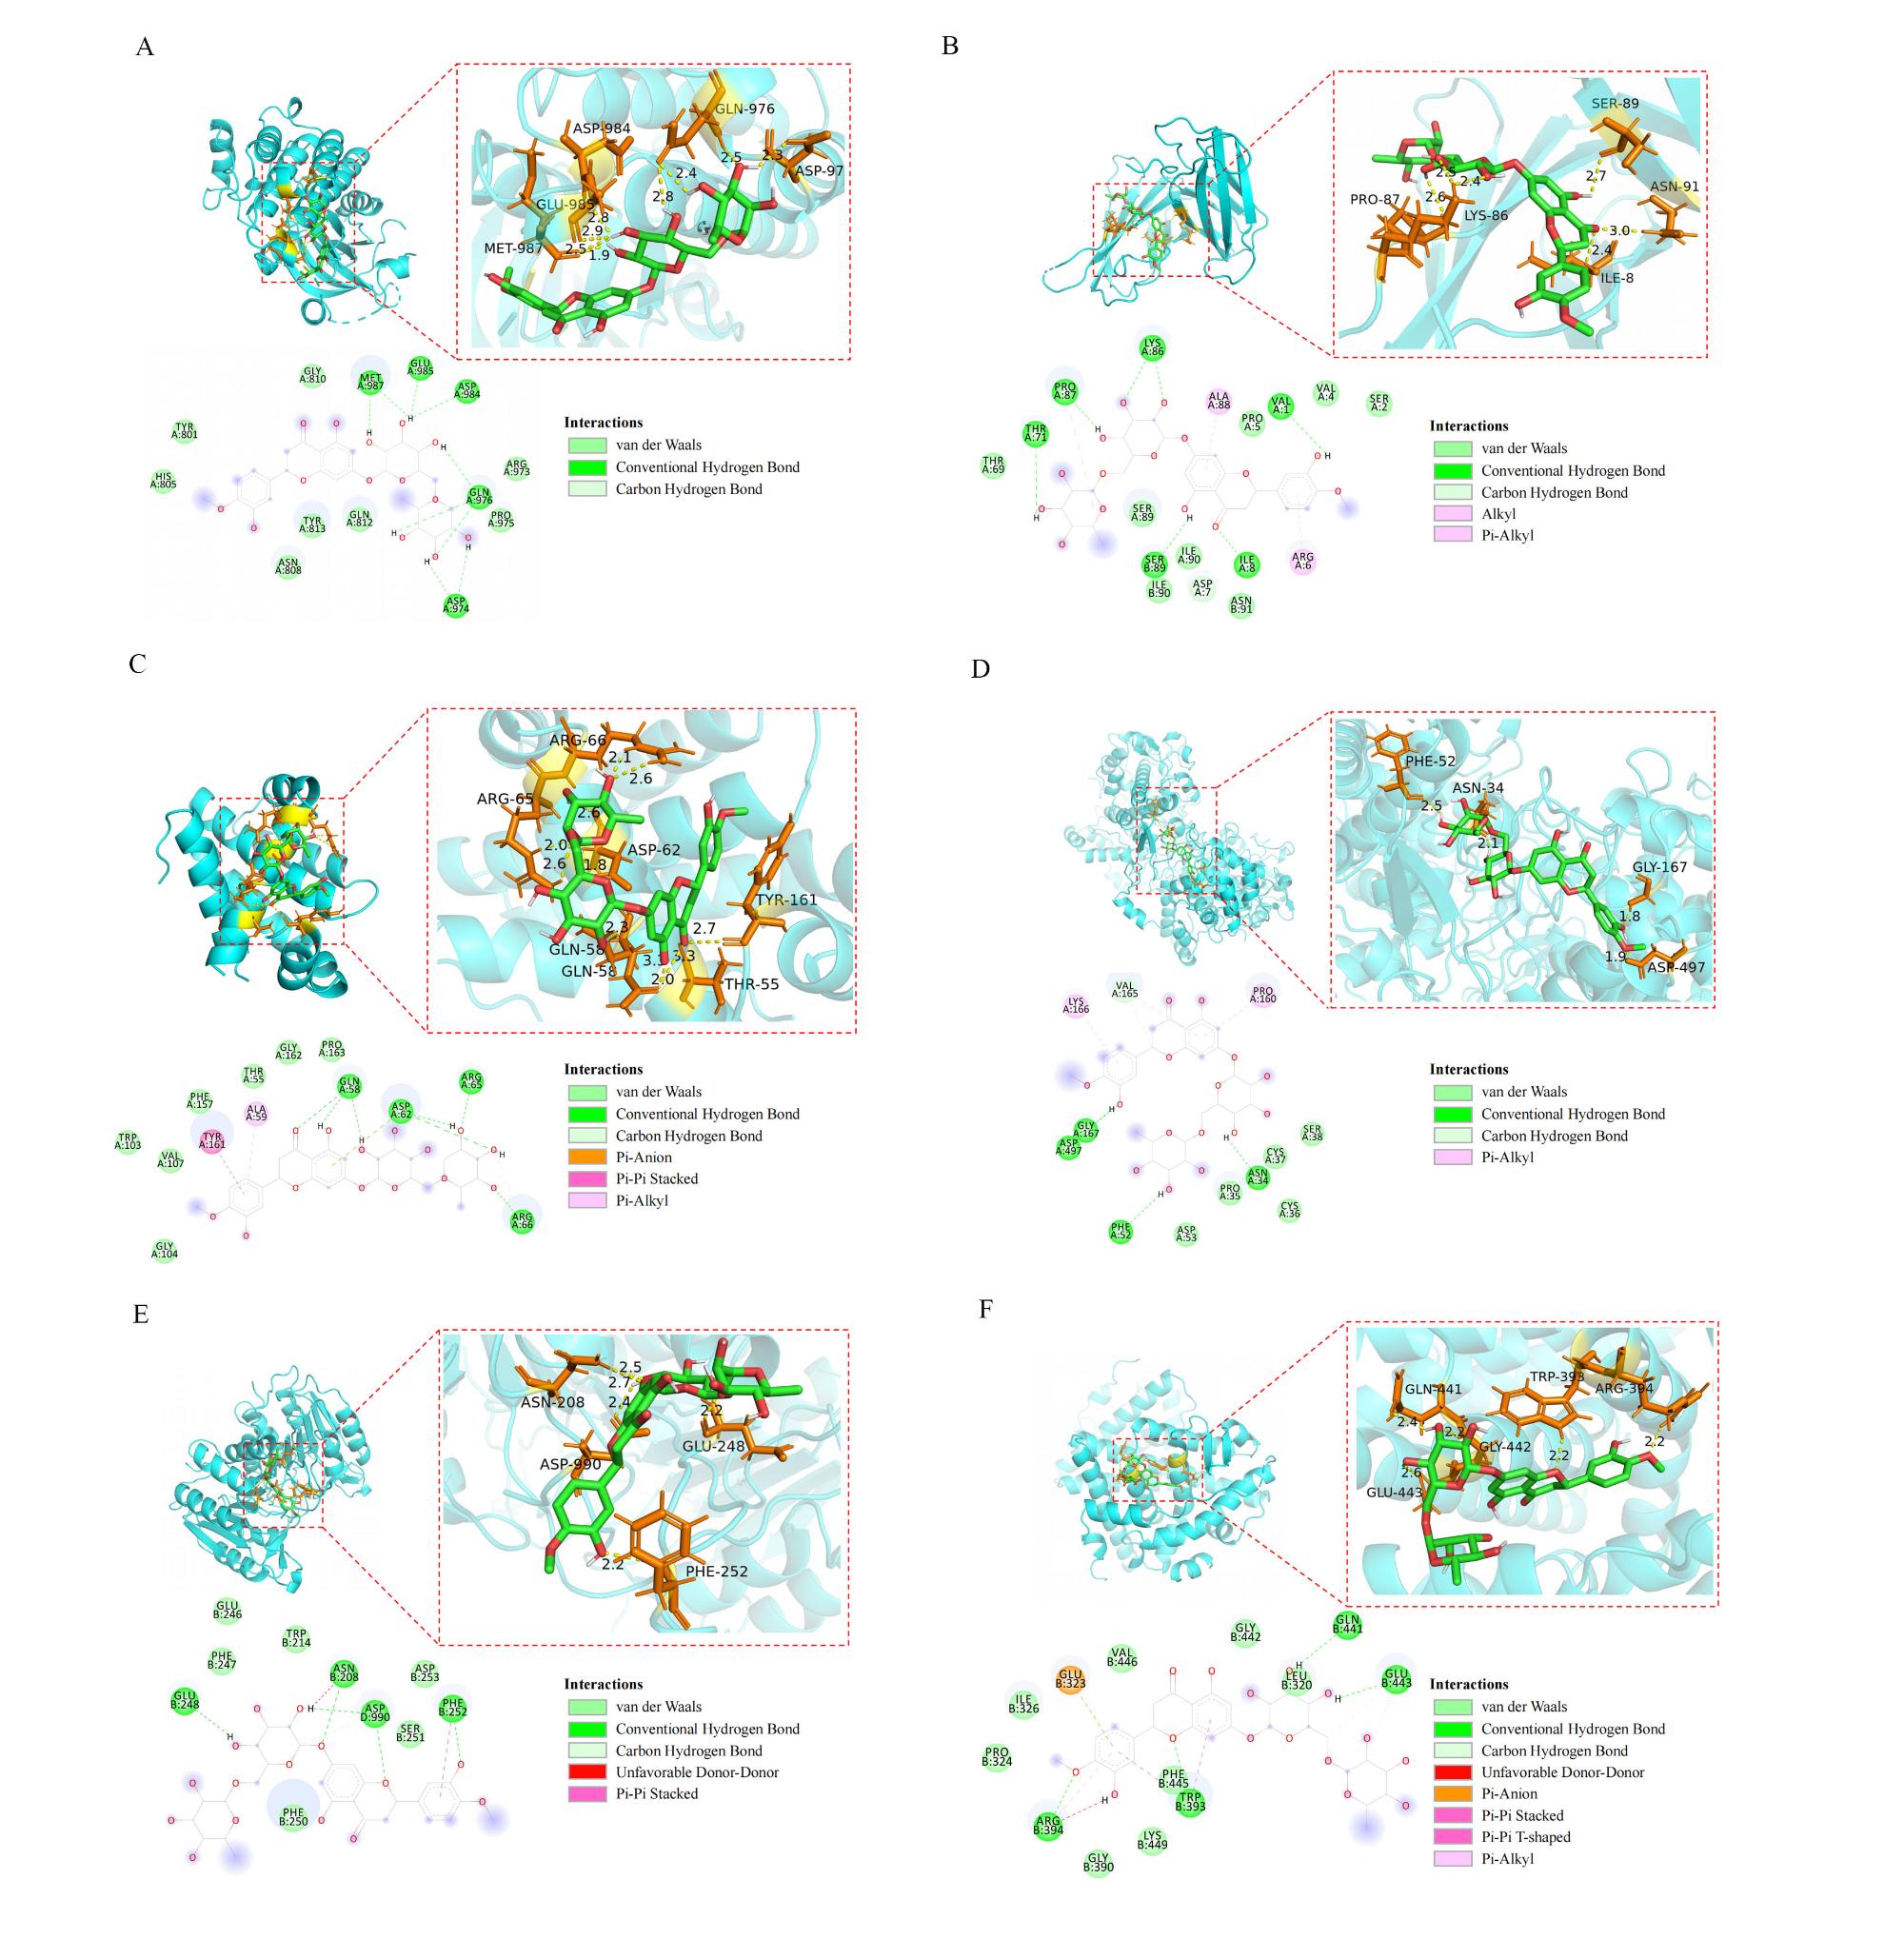
为评估橙皮苷与核心靶点的结合特性,将橙皮苷与EGFR、FN1、BCL2、PTGS2、CASP3和ESR1进行分子对接分析。橙皮苷的基本信息和化学结构见表3图5展示了橙皮苷与靶蛋白分子间相互作用模式,氢键与各靶点结合位点包括:EGFR[蛋氨酸(MET)-987、谷氨酸(GLU)-985、天冬氨酸(ASP)-984、谷氨酰胺(GLN)-976、ASP-974)]、FN1[赖氨酸(LYS)-86、脯氨酸(PRO)-87、苏氨酸(THR)-71、丝氨酸(SER)-89、异亮氨酸(ILE-8)、缬氨酸(VAL)-1]、BCL2[精氨酸(ARG)-65、ARG-66、ASP-62、GLN-58]、PTGS2[甘氨酸(GLY)-167、苯丙氨酸(PHE)-52、天冬酰胺(ASN)-34、VAL-165]、CASP3(GLU-248、ASN-208、ASP-990、PHE-252)以及ESR1[ARG-394、GLU-443、GLN-441、色氨酸(TRP)-393]。结合能是评估受体与配体相互作用的关键指标,其值越低通常表示亲和力越强、复合物构象越稳定[14],一般认为,结合能低于-5.0 kcal/mol表明二者具有较强结合活性[15-16]。如表4所示,橙皮苷与BCL2和EGFR的结合能分别为-5.63和-5.10 kcal/mol,主要通过氢键、范德华力及碳氢键等与靶蛋白稳定结合,进一步从能量与结构层面支持BCL2和EGFR是橙皮苷缓解断奶仔猪肠道黏膜损伤的关键作用靶点。
表3 橙皮苷的基本信息和化学结构

Table 3 Basic information and chemical structure of hesperidin

名称
Name
PubChem编号
PubChem ID
分子式
Molecular
formula
分子质量
Molecular
weight/u
SMILES分子表达式
SMILES molecular
expression formula
分子结构
Molecular structure
橙皮苷
Hesperidin
10621 C28H34O15 610.56 OC1=C(OC)C=CC([C@@H]2CC(C3=
C(C=C(O[C@@H]4O[C@H](CO
[C@@H]5O[C@@H](C)[C@H](O)
[C@@H](O)[C@H]5O)[C@@H](O)
[C@H](O)[C@H]4O)C=C3O)O2)=
O)=C1
图5 橙皮苷与核心靶蛋白的分子对接可视化图谱

Interactions:相互作用;van der Waals:范德华力;Conventional Hydrogen Bond:经典氢键;Carbon Hydrogen Bond:碳氢键;Unfavorable Donor-Donor:不利氢键供体;Pi-Anion:阴离子-π相互作用;Pi-Pi Stacked:π-π堆积;Pi-Pi T-shaped:π-π T型堆积;Pi-Akyl:π-烷基;MET:蛋氨酸 methionine;GLU:谷氨酸 glutamate;ASP:天冬氨酸 aspartate;LYS:赖氨酸 lysine;PRO:脯氨酸 proline;THR:苏氨酸 threonine;SER:丝氨酸 serine;ILE:异亮氨酸 isoleucine;VAL:缬氨酸 valine;ARG:精氨酸 arginine;GLN:谷氨酰胺;GLY:甘氨酸 Glycine;PHE:苯丙氨酸 phenylalanine;ASN:天冬酰胺 asparagine;TRP:色氨酸 tryptophan。

A:橙皮苷-EGFR复合物 hesperidin-EGFR complex;B:橙皮苷-FN1复合物 hesperidin-FN1 complex;C:橙皮苷-BCL2复合物 hesperidin-BCL2 complex;D:橙皮苷-PTGS2复合物 hesperidin-PTGS2 complex;E:橙皮苷-CASP3复合物 hesperidin-CASP3 complex;F:橙皮苷-ESR1复合物 hesperidin-ESR1 complex。

Fig.5 Molecular docking visualization of hesperidin and core target proteins

表4 橙皮苷与核心靶蛋白的分子对接结果

Table 4 Molecular docking results of hesperidin and core target proteins

项目
Items
PDB编号
PDB ID
结合能
Binding energy/
(kcal/mol)
作用位点
Combination site
表皮生长因子受体
EGFR
8S1M -5.10 MET-987、GLU-985、ASP-984、GLN-976、ASP-974、GLY-810、
ARG-973、PRO-975、GLN-812、TYR-813、
ASN808、HIS-805、TYR-801
纤维连接蛋白1
FN1
2CK2 -4.15 LYS-86、PRO-87、THR-71、SER-89、ILE-8、VAL-1、ARG-6、
ALA-88、ASN-91、ASP-7、ILE-90、THR-69、CAL-4、SER-2
B淋巴细胞瘤2
BCL2
4IEH -5.63 ARG-65、ARG-66、ASP-62、GLN-58、GLY-104、VAL-107、TRP-103、
PHE-157、THR-55、TYR-161、ALA-59、GLY-162、PRO-163
前列腺素内过氧化物合酶2
PTGS2
5F1A -3.70 GLY-167、PHE-52、ASN-34、VAL-165、PRO-160、LYS-166、
ASP-497、ASP-53、PRO-35、CYS-36、CYS-37、SER-38
半胱天冬酶3
CASP3
4JQY -2.00 GLU-248、ASN-208、ASP-990、PHE-252、PHE-247、GLU-246、
TRP-214、ASP-253、PHE-250
雌激素受体1
ESR1
3CBM -2.60 AGR-394、GLU-443、GLN-441、PHE-445、TRP-393、
GLU-323、GLY-442、LEU-320、LYS-449、GLY-390、
PRO-324、ILE-326、VAL-446

MET:蛋氨酸 methionine;GLU:谷氨酸 glutamate;ASP:天冬氨酸 aspartate;LYS:赖氨酸 lysine;PRO:脯氨酸 proline;THR:苏氨酸 threonine;SER:丝氨酸 serine;ILE:异亮氨酸 isoleucine;VAL:缬氨酸 valine;ARG:精氨酸 arginine;GLN:谷氨酰胺;GLY:甘氨酸 Glycine;PHE:苯丙氨酸 phenylalanine;ASN:天冬酰胺 asparagine;TRP:色氨酸 tryptophan。

2.5 靶蛋白-橙皮苷复合物分子动力学模拟结果

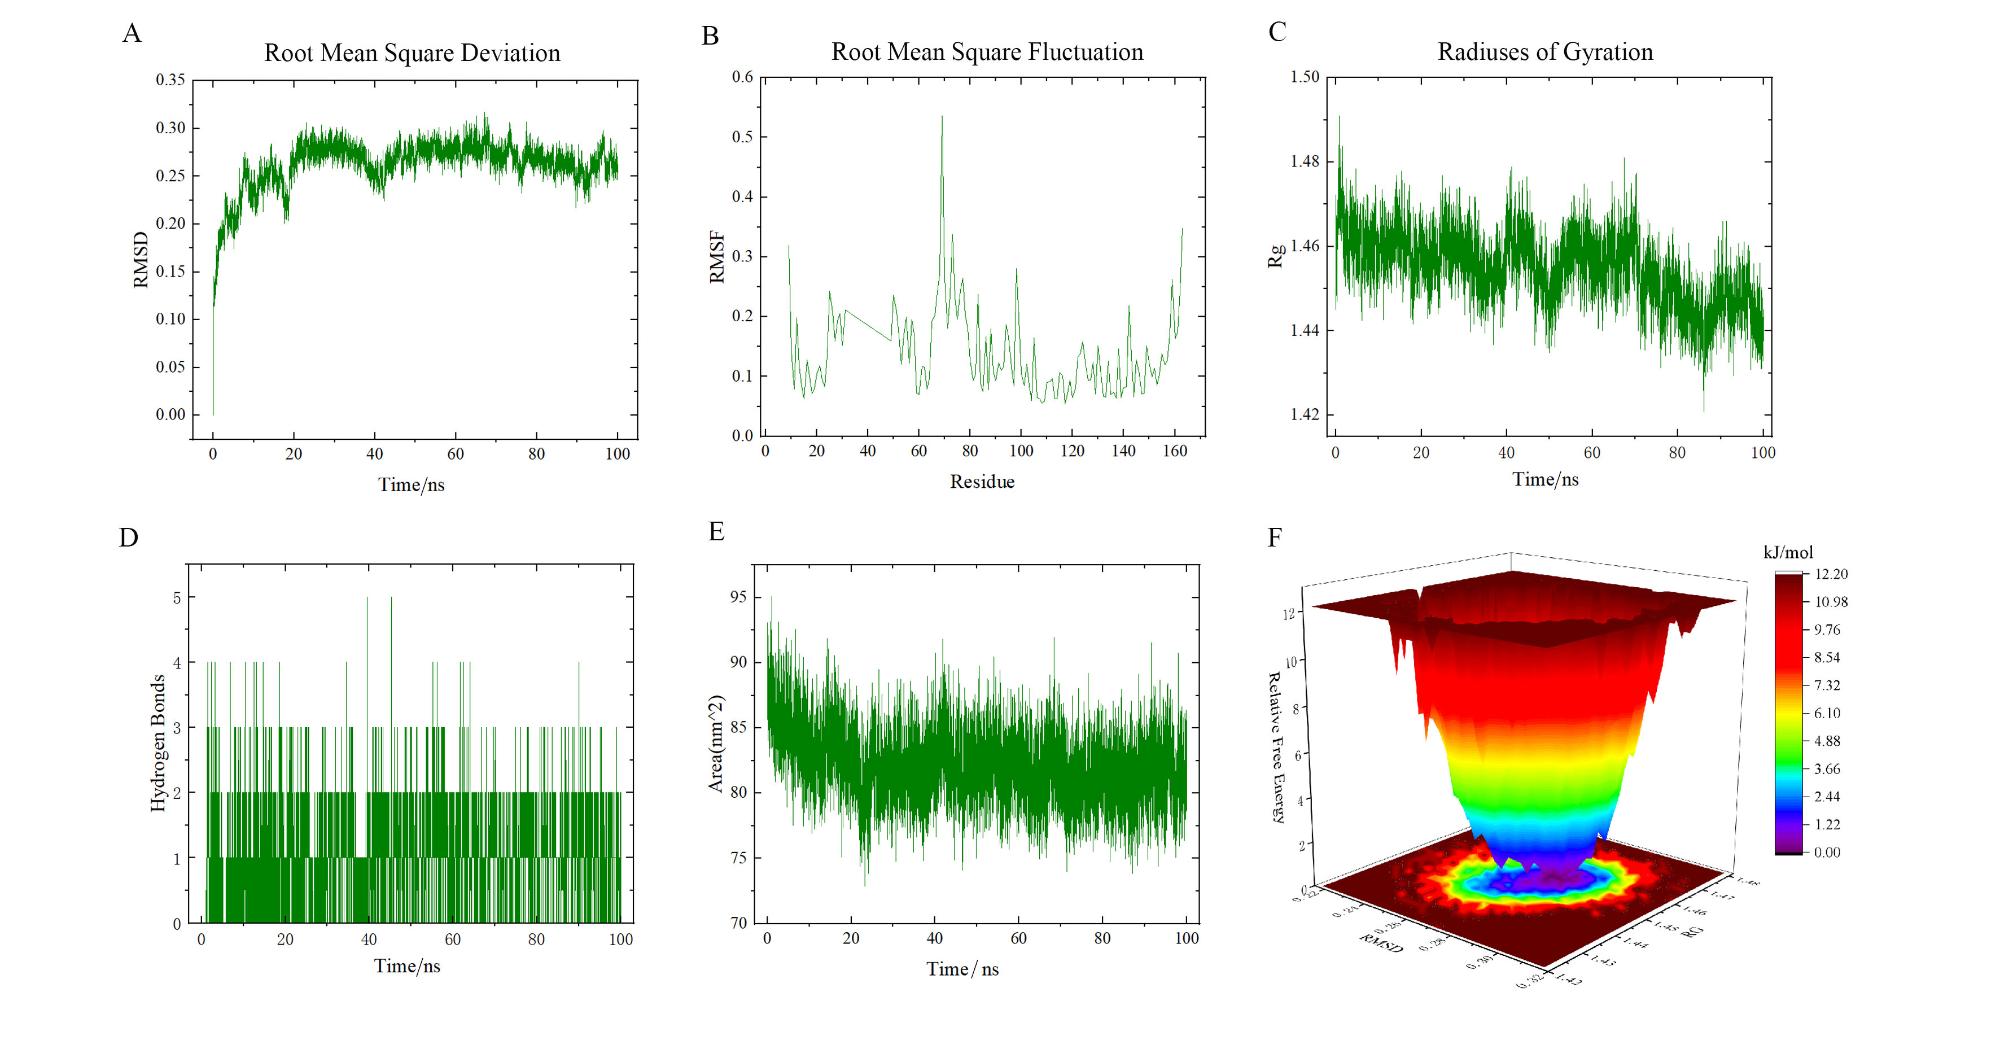
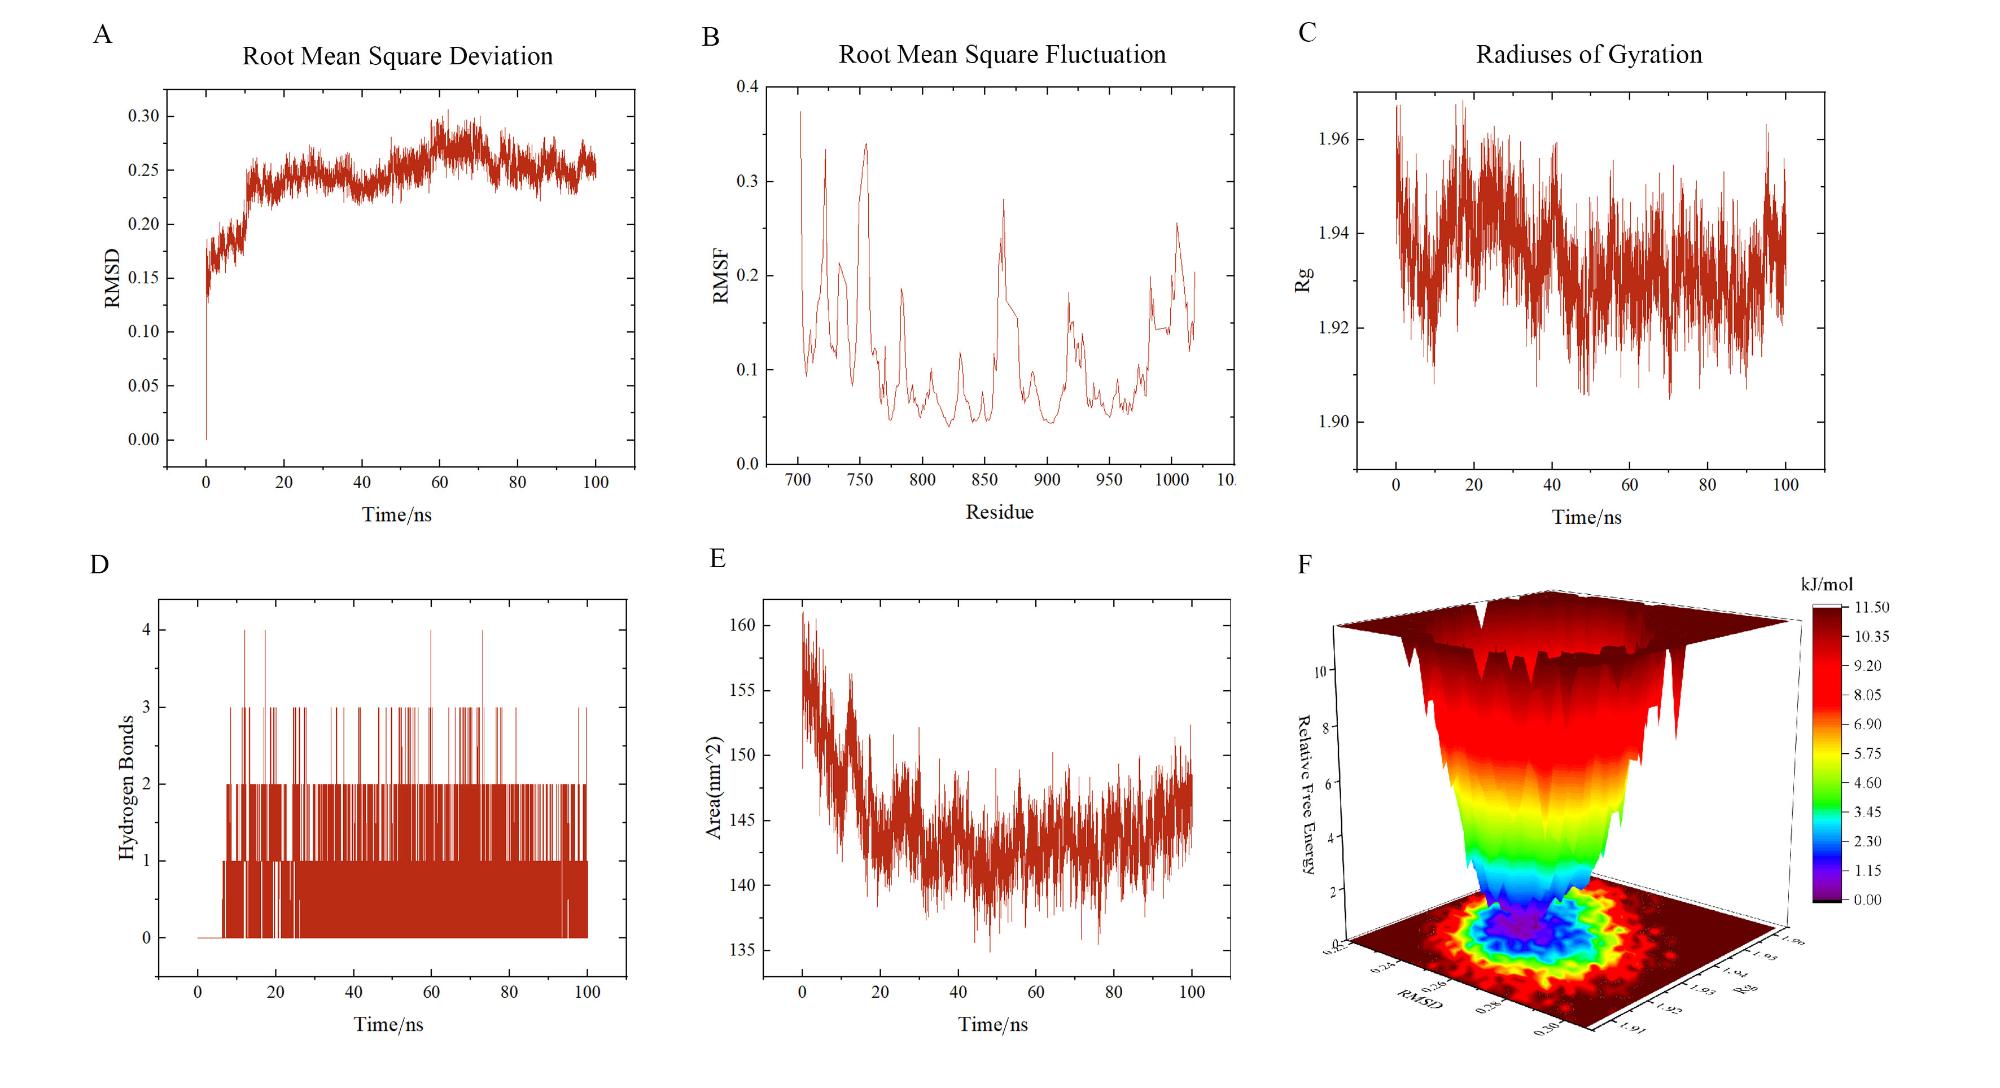
经典的分子对接方法多采用刚性受体模型,其局限性在于无法充分模拟蛋白质在与配体结合时可能发生的整体构象变化[17-18]。因此,通过分子动力学模拟进一步验证橙皮苷与BCL2和EGFR的结合模式,评估其成药潜力。根均方偏差(root mean square deviation,RMSD)用于衡量受体-配体复合物在运动过程中的稳定性。橙皮苷-BCL2和橙皮苷-EGFR复合物在分别在20和15 ns后,RMSD数值波动范围在1 Å(图6-A图7-A),表明复合物体系稳定;均方根波动(root mean square fluctuation,RMSF)可以评估受体-配体复合物氨基酸骨架原子在模拟过程中的波动幅度。橙皮苷-BCL2和橙皮苷-EGFR复合物的RMSF数值分别处于0.5~5.5 Å(图6-B)和0.5~4.0 Å(图7-B),相对较小波动范围表明复合物氨基酸残基具有相对稳定的结构。回旋半径(radiuses of gyration,Rg)反映了蛋白质分子的整体紧凑程度;2个复合物的Rg数值均小于2 nm且变动范围均在1 Å以内(图6-C图7-C),表明蛋白质构象紧凑,在模拟过程中处于动态平衡与稳定的折叠状态。
图6 BCL2与橙皮苷相互作用的分子动力学模拟分析

RMSD:根均方偏差 root mean square deviation;RMSF:均方根波动 root mean square fluctuation;RG:回旋半径 radiuses of gyration;Hydrogen Bonds:氢键;Area:面积;Relative Free Energy:相对自由能。Time:时间。

A:受体-配体复合物0~100 ns的RMSD RMSD of the receptor-ligand complex from 0 to 100 ns;B:受体-配体复合物0~100 ns的RMSF RMSF of the receptor-ligand complex from 0 to 100 ns;C.回旋半径 radius of gyration;D:氢键数量 number of hydrogen bonds;E:溶剂可及表面积分析 solvent accessible surface area analysis;F:自由能景观图 Free energy landscape。图8同 the same as Fig.8

Fig.6 Molecular dynamics simulation analysis of interaction between BCL2 and hesperidin

图7 EGFR与橙皮苷相互作用的分子动力学模拟分析

Fig.7 Molecular dynamics simulation analysis of interaction between EGFR and hesperidin

氢键是配体与蛋白质稳定结合的关键驱动力。结果表明,橙皮苷与BCL2和EGFR之间分别保持了最多5个(图6-D)和4个(图7-D)稳定氢键,与对接结果一致,进一步证实二者结合良好。溶剂可及表面积(solvent-accessibility surface area,SASA)反映了靶蛋白在模拟过程中暴露于溶剂中的表面积。结果显示,0~20 ns区间靶蛋白的SASA稳定下降,表明蛋白质逐步紧缩,之后蛋白质疏水性残基暴露于溶剂中趋于稳定(图6-E图7-E)。能量景观图能反映蛋白质的折叠过程及其最稳定构象的详细信息。图6-F图7-F分别展示了橙皮苷-BCL2与橙皮苷-EGFR复合物基于PC1(RMSD)和PC2(Rg)的自由能分布,能量范围分别为0~12.20 kJ/mol和0~11.50 kJ/mol。图中深蓝色区域对应低能量(最稳定)构象[19]。2个复合物均呈现一个全局最小值及较广的局部稳定区域,说明其整体构象稳定,且结合过程未引发大规模结构变化,表现出良好的能量稳定性与构象保守性。

2.6 橙皮苷对氧化应激IPEC-J2细胞增殖的影响

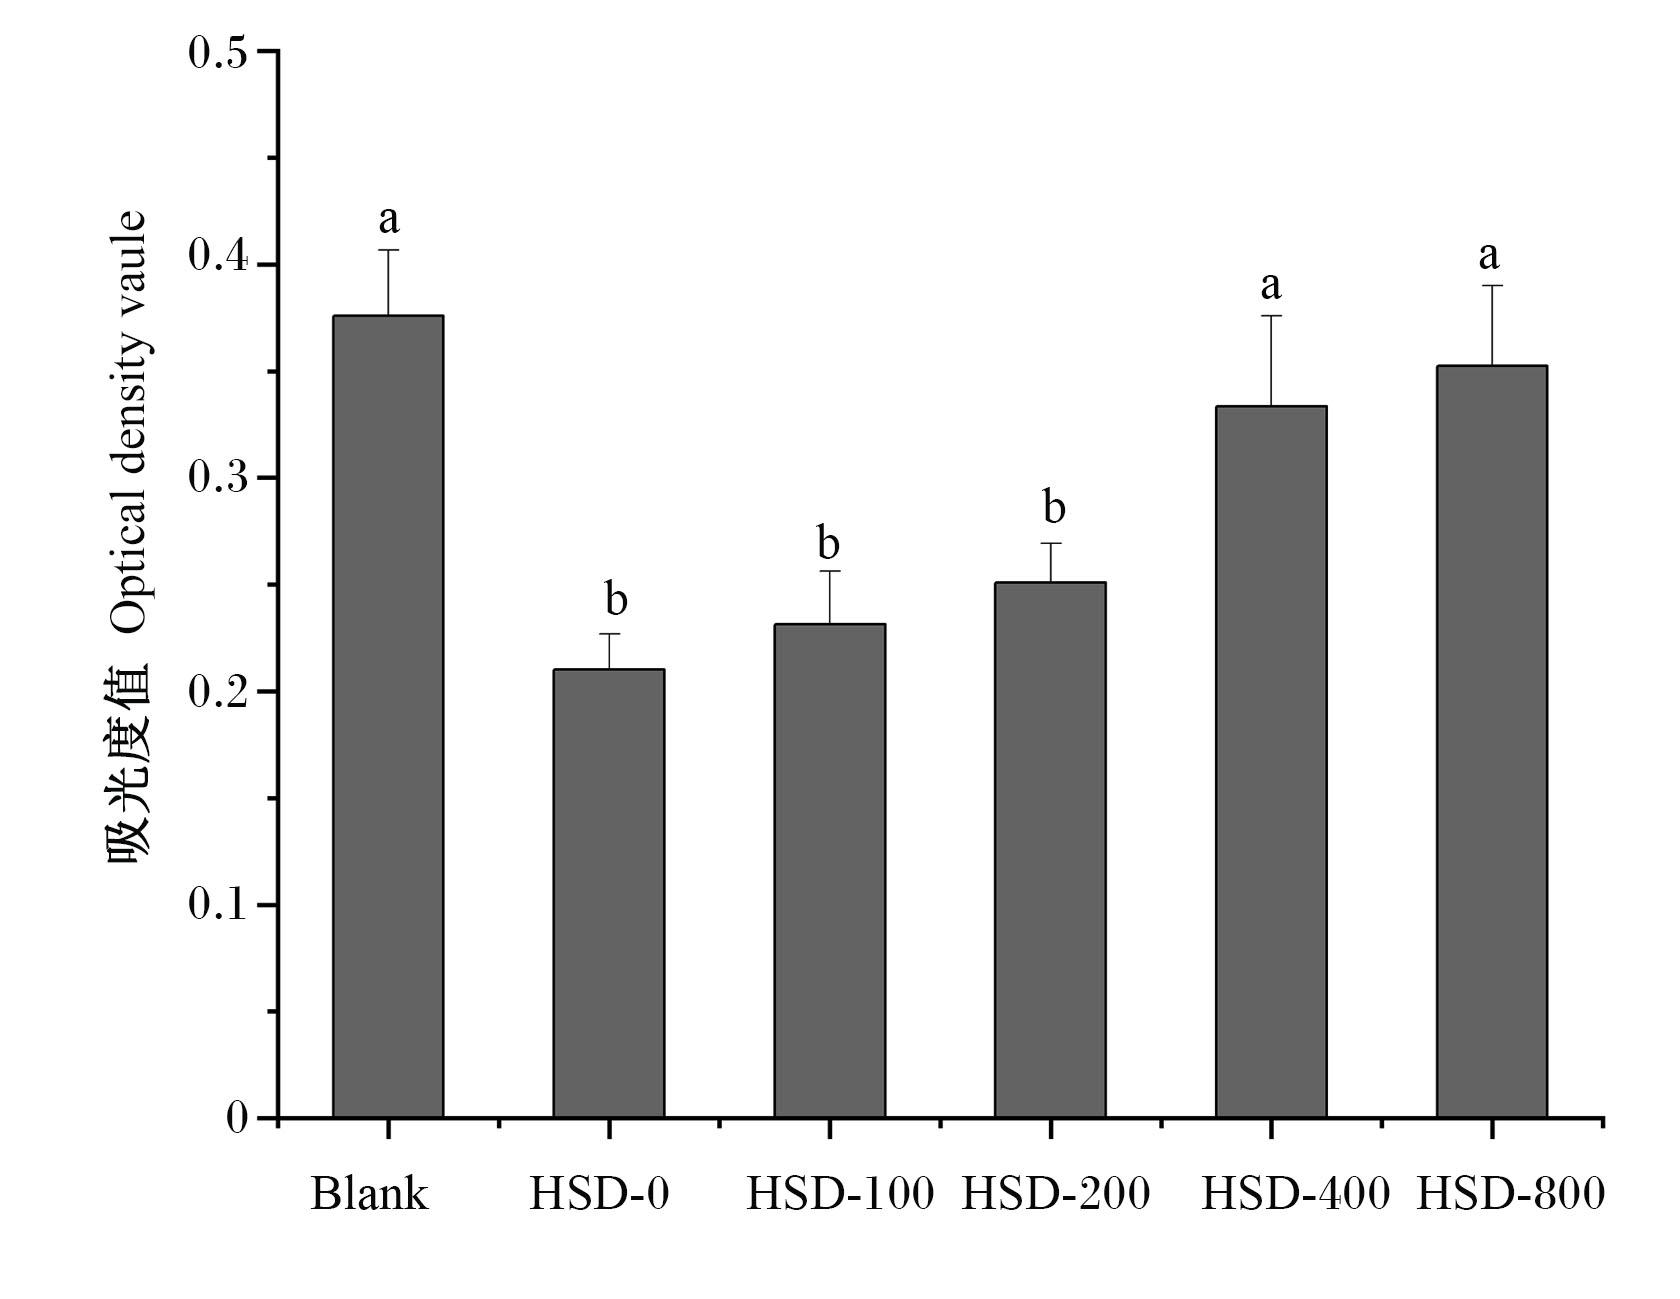
图8所示,与空白组相比,HSD-0、HSD-100、HSD-200组细胞活力显著降低(P<0.05),HSD-400、HSD-800组细胞活力差异不显著(P>0.05);且HSD-400、HSD-800组细胞活力显著高于HSD-0、HSD-100、HSD-200组(P<0.05)。这说明橙皮苷浓度在0~200 μmol/L时,对IPEC-J2细胞增殖无显著影响;当橙皮苷浓度增加到400 μmol/L时,表现出对IPEC-J2细胞显著的促增殖作用,且该作用在橙皮苷浓度进一步增加至800 μmol/L时持续增强,呈现剂量依赖效应。
图8 橙皮苷对IPEC-J2细胞活力的影响

Blank:空白组 Blank group;HSD-0:0 μmol/L橙皮苷组 0 μmol/L hesperidin group;HSD-100:100 μmol/L橙皮苷组 100 μmol/L hesperidin group;HSD-200:200 μmol/L橙皮苷组 200 μmol/L hesperidin group;HSD-400:400 μmol/L橙皮苷组 400 μmol/L hesperidin group;HSD-800:800 μmol/L橙皮苷组 800 μmol/L hesperidin group。

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05).

Fig.8 Effects of hesperidin on viability of IPEC-J2 cells

2.7 橙皮苷对氧化应激IPEC-J2细胞核心靶基因表达的影响

表5所示,与空白组相比,HSD-0组IPEC-J2细胞EGFRBCL2和FN1的mRNA相对表达水平显著降低(P<0.05),PTGS2和CASP3的mRNA相对表达水平显著升高(P<0.05)。与HSD-0组相比,HSD-400组IPEC-J2细胞BCL2、FN1和EGFR的mRNA相对表达水平显著升高(P<0.05),PTGS2的mRNA相对表达水平显著降低(P<0.05);CASP3的mRNA相对表达水平无显著差异(P>0.05)。各组之间IPEC-J2细胞ESR1的mRNA相对表达水平无显著差异(P>0.05)。
表5 橙皮苷对氧化应激IPEC-J2细胞核心靶基因mRNA表达的影响

Table 5 Effects of hesperidin on mRNA expression of core target genes in oxidative stress-induced IPEC-J2 cells

基因
Genes
组别 Groups P
P-value
空白 Blank HSD-0 HSD-400
表皮生长因子受体 EGFR 1.02±0.25a 0.41±0.11b 0.83±0.13a 0.019
纤维连接蛋白1 FN1 1.01±0.19a 0.42±0.17b 0.76±0.10a 0.021
B淋巴细胞瘤2 BCL2 1.01±0.16a 0.48±0.14b 0.79±0.11a 0.033
前列腺素内过氧化物合酶2 PTGS2 1.00±0.12b 1.66±0.25a 1.27±0.15b 0.027
胱天蛋白酶3 CASP3 1.01±0.18b 1.54±0.28a 1.25±0.13a 0.039
雌激素受体1 ESR1 1.01±0.20 0.80±0.17 0.85±0.15 0.353

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05).

3 讨论

3.1 橙皮苷缓解断奶仔猪肠道黏膜损伤的作用靶点

本研究通过网络药理学分析得到EGFR、BCL2、FN1、PTGS2、CASP3和ESR1等46个橙皮苷缓解肠道黏膜损伤的关联靶点。EGFR及其配体表皮生长因子(EGF)通过激活丝裂原活化蛋白激酶(MAPK)和蛋白激酶B(AKT)信号通路,促进肠道干细胞的增殖[20]。橙皮苷通过下调钠/葡萄糖协同转运蛋白5A1(SLC5A1)的表达并降低EGFR磷酸化,从而抑制结肠癌细胞的增殖、迁移和侵袭能力[21]。BCL2和CASP3是调控线粒体凋亡途径的关键因子[22]。Zhu等[23]研究发现,断奶仔猪肠道中抑凋亡基因BCL2表达下调,促凋亡基因CASP3和胱天蛋白酶8(CASP8)表达上调,导致肠组织DNA片段化并同时激活内源性与外源性凋亡途径,促进肠细胞凋亡。Muhammad等[24]研究发现,橙皮苷可通过上调BCL2并下调B细胞淋巴瘤2相关X蛋白(Bax)和CASP3蛋白表达,抑制脂多糖诱导的神经元凋亡。PTGS2是一种在炎症与肿瘤中起关键作用的诱导酶;其在正常组织中表达水平较低,可在白介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)等促炎因子的刺激下被迅速诱导,呈现高表达[25]。Saiprasad等[26]报道,橙皮苷能通过抑制诱导型一氧化氮合酶(iNOS)的表达减轻氧化应激,并下调由乙氧基甲烷诱导的小鼠试验性结肠癌的增生和炎性标志物(PTGS2)的表达,从而缓解肠道炎症发生。FN1是一种高分子量糖蛋白,通过与细胞表面及细胞外基质组分结合,在细胞黏附、迁移、生长、分化及伤口愈合等过程中发挥重要作用,并参与维持细胞形态[27]。Cinar等[28]研究发现,橙皮苷可通过调控转化生长因子-β2(TGF-β2)信号通路,上调间充质标志物FN1的表达,进而抑制上皮间充质转化。ESR1的作用机制涉及与雌激素结合后,促进受体的二聚化和核内转位,进而调控下游基因转录,调控细胞增殖、分化和凋亡[29]。橙皮苷通过激活雌激素信号通路中的ESR1抑制成骨细胞凋亡,缓解骨质疏松症[30]。橙皮苷作用于上述靶点暗示其可能通过调控肠上皮细胞更新抑制炎症反应,在缓解断奶仔猪肠道黏膜损伤方面发挥积极作用。

3.2 橙皮苷缓解断奶仔猪肠道黏膜损伤的协同作用机制

GO功能富集分析揭示了橙皮苷通过多层面协同缓解肠道黏膜损伤的作用特征。在生物过程中,其对细胞凋亡、细胞间黏附及胶原分解代谢过程的协同调控,表明橙皮苷可同时干预上皮细胞凋亡、物理屏障及组织修复。细胞组分方面,靶点富集于细胞质膜、细胞外间隙和线粒体这一从信号感知到凋亡执行的完整路径,与生物过程形成清晰的关联。在分子功能层面,整合素结合与金属内肽酶活性的富集,揭示了橙皮苷调控细胞黏附与基质重塑的分子基础。KEGG通路富集分析结果表明,橙皮苷的作用与AGE-RAGE信号通路、癌症通路、细胞凋亡及TNF信号通路等关键通路密切相关。癌症通路和细胞凋亡通路与肠道炎症密切相关,它们通过调控免疫反应、细胞增殖/凋亡平衡及组织修复,共同影响肠黏膜炎症的发生[31-32]。TNF-α可激活胱天蛋白酶级联反应,诱导上皮细胞凋亡,破坏闭合蛋白(occludin)和封闭蛋白(claudin),导致肠黏膜通透性增加,细菌易位,加剧肠道炎症损伤[33]。橙皮苷通过抑制TNF-α和干扰素-γ(IFN-γ)协同诱导引起的跨内皮电阻降低和细胞形态结构损坏,有效缓解肠上皮细胞炎症反应[10]。Guo等[9]报道橙皮苷有助于保护线粒体功能,减少活性氧生成,抑制细胞凋亡,进而减轻氧化应激状态下的仔猪肠道屏障损伤。上述研究表明,橙皮苷可通过协同调控炎症反应、屏障功能及上皮细胞更新等环节共同促进肠道健康。

3.3 橙皮苷与核心靶点的分子对接和分子动力学模拟

黄酮类化合物具有由2个苯环(A环和B环)通过1个三碳链连接而成的C6-C3-C6骨架结构;其药理作用主要体现在调控细胞分化、增殖与凋亡等生物学过程[34-35]。从分子机制上看,其酚羟基可与靶蛋白氨基酸残基形成氢键以增强相互作用;B环的连接特征则直接决定结合亲和力,并影响下游信号通路与细胞因子表达[36]。分子对接表明,BCL2和EGFR与橙皮苷有强烈的结合活性,且主要通过形成氢键进行相互作用。这与之前的研究一致,证实氢键是黄酮类化合物发挥结合亲和力与生物活性的关键[37-38]。分子动力学模拟证实,橙皮苷与BCL2和EGFR形成的复合物在动态过程中构象稳定。尽管BCL2和EGFR是常见的药物作用靶点,但本研究揭示橙皮苷与二者结合的氢键模式、自由能及动态参数均具独特结构特征,这可能是其发挥特异性生物学功能的基础,也为后续功能验证提供了精准的靶点与结构依据。

3.4 橙皮苷协同调控靶基因干预肠上皮细胞氧化损伤

断奶应激诱导的仔猪肠黏膜氧化损伤是导致黏膜屏障破坏、上皮细胞凋亡及生长性能降低的关键因素[23,39]。研究表明,橙皮苷可通过清除活性氧、调节相关酶活性及促进细胞增殖等途径维护肠道黏膜结构与功能[40-41];并在促生长、抗炎与免疫调节方面表现出药理潜力[9,42]。本研究证实,橙皮苷能显著缓解氧化应激诱导的肠上皮细胞损伤。其机制涉及多靶点协同调控:通过上调BCL2、EGFRFN1表达促进肠上皮细胞存活与修复,同时抑制PTGS2表达以减轻炎症反应。值得注意的是,橙皮苷未显著下调CASP3的表达,这可能与其作为凋亡终端因子的转录调控时序性特征有关[22];同时,ESR1表达稳定则可能与IPEC-J2细胞作为非内分泌细胞系,其内源性ESR1通路对急性氧化应激不敏感有关。然而,本研究结论主要基于计算预测与基因表达变化的关联性证据,在机制阐释上存在一定局限性。橙皮苷是否确实通过调控上述靶点和功能通路发挥肠黏膜保护作用,尚需进一步的试验验证。

4 结论

网络药理学分析发现,橙皮苷作用于EGFR、FN1、BCL2、PTGS2、CASP3和ESR1等核心靶点,协同调控癌症通路、细胞凋亡及TNF信号通路等相关通路,促进断奶仔猪肠道健康。分子对接和动力学模拟解析了橙皮苷与靶点间稳定的结合模式与低能量构象;细胞试验证实,橙皮苷能有效缓解肠上皮细胞氧化损伤,其作用机制可能与多靶点协同调控网络相关。本研究从“药物-靶点-通路-细胞”维度为系统阐明橙皮苷缓解断奶仔猪肠道黏膜损伤的分子机制提供了多层次证据,但橙皮苷在体内与靶点的互作机制及最佳应用剂量仍有待进一步探究。
[1]
HAN X B, HU X D, JIN W, et al. Dietary nutrition,intestinal microbiota dysbiosis and post-weaning diarrhea in piglets[J]. Animal Nutrition, 2024, 17:188-207.

DOI

[2]
LAN H J, WANG H, CHEN C, et al. Flavonoids and gastrointestinal health:single molecule for multiple roles[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(30):10987-11005.

DOI

[3]
邹立军, 邵宜锐, 熊霞, 等. 黄酮类化合物调控断奶仔猪肠黏膜屏障功能的研究进展[J]. 中国科学(生命科学), 2025, 55(1):30-44.

ZOU L J, SHAO Y R, XIONG X, et al. Current advances on the regulation of intestinal mucosal barrier function in weaned piglets by flavonoids[J]. Scientia Sinica Vitae, 2025, 55(1):30-44. (in Chinese)

[4]
李兰柱, 胡红莲, 高民, 等. 黄酮类化合物对动物胃肠道健康调控作用的研究进展[J]. 动物营养学报, 2023, 35(3):1444-1453.

DOI

LI L Z, HU H L, GAO M, et al. Research progress in regulatory effects of flavonoids on animal gastrointestinal health[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1444-1453. (in Chinese)

DOI

[5]
WILMSEN P K, SPADA D S, SALVADOR M. Antioxidant activity of the flavonoid hesperidin in chemical and biological systems[J]. Journal of Agricultural and Food Chemistry, 2005, 53(12):4757-4761.

PMID

[6]
何邵平, 呙于明, 郭吉余. 橙皮苷的生理功能及在家禽生产中的应用[J]. 中国饲料, 2023(7):148-152.

HE S P, GUO Y M, GUO J Y. Biological functions of hesperidin and its application in poultry production[J]. China Feed, 2023(7):148-152. (in Chinese)

[7]
王磊, 栗栖凤. 橙皮苷的生物活性及其在畜牧业中的应用[J]. 饲料研究, 2021, 44(1):147-150.

WANG L, LI Q F. Biological activity of hesperidin and its application in animal husbandry[J]. Feed Research, 2021, 44(1):147-150. (in Chinese)

[8]
LI X, LIN Q, GOU F Y, et al. Effects of hesperidin on mitochondrial function,mitochondria-associated endoplasmic reticulum membranes and IP3R-MCU calcium axis in the intestine of piglets exposed to deoxynivalenol[J]. Food & Function, 2024, 15(12):6459-6474.

[9]
GOU F Y, LIN Q, TU X D, et al. Hesperidin alleviated intestinal barrier injury,mitochondrial dysfunction,and disorder of endoplasmic reticulum mitochondria contact sites under oxidative stress[J]. Journal of Agricultural and Food Chemistry, 2024, 72(29):16276-16286.

DOI

[10]
GUO K, REN J N, GU G S, et al. Hesperidin protects against intestinal inflammation by restoring intestinal barrier function and up-regulating Treg cells[J]. Molecular Nutrition & Food Research, 2019, 63(11):e1800975.

[11]
ESTRUEL-AMADES S, MASSOT-CLADERA M, PÉREZ-CANO F J, et al. Hesperidin effects on gut microbiota and gut-associated lymphoid tissue in healthy rats[J]. Nutrients, 2019, 11(2):324.

DOI

[12]
刁其玉, 张春桃, 屠焰. 网络药理学在动物营养与健康养殖中的研究进展[J]. 饲料工业, 2025, 46(11):1-9.

DIAO Q Y, ZHANG C T, TU Y. Research advances in network pharmacology applications for animal nutrition and health-oriented husbandry[J]. Feed Industry, 2025, 46(11):1-9. (in Chinese)

[13]
VIEIRA I H P, BOTELHO E B, DE SOUZA GOMES T J, et al. Visual dynamics:a WEB application for molecular dynamics simulation using GROMACS[J]. BMC Bioinformatics, 2023, 24(1):107.

DOI

[14]
KAMARAJ B. Exploring the therapeutic potential of epigallocatechin-3-gallate (green tea) in periodontitis using network pharmacology and molecular modeling approach[J]. International Journal of Molecular Sciences, 2025, 26(18):9144.

DOI

[15]
杨胜男, 赵斗, 蔡梦权, 等. 基于网络药理学和分子对接探究菜芙蓉黄酮的免疫调节机制研究[J]. 中国畜牧杂志, 2024, 60(12):309-318.

YANG S N, ZHAO D, CAI M Q, et al. Immune regulatory mechanism of A.manihot (L.) medic flavonoids based on network pharmacology and molecular docking[J]. Chinese Journal of Animal Science, 2024, 60(12):309-318. (in Chinese)

[16]
HUANG Z Z, DU X, MA C D, et al. Identification of antitumor active constituents in Polygonatum sibiricum flower by UPLC-Q-TOF-MSE and network pharmacology[J]. ACS Omega, 2020, 5(46):29755-29764.

DOI

[17]
FRIMURER T M, PETERS G H, IVERSEN L F, et al. Ligand-induced conformational changes:improved predictions of ligand binding conformations and affinities[J]. Biophysical Journal, 2003, 84(4):2273-2281.

DOI

[18]
MENG X Y, ZHANG H X, MEZEI M, et al. Molecular docking:a powerful approach for structure-based drug discovery[J]. Current Computer-Aided Drug Design, 2011, 7(2):146-157.

[19]
ZHU J Y, ZHANG J L, ZHANG P Y, et al. Energy barriers of peptide translocation in nanopores:insights from MD simulations[J]. The Journal of Physical Chemistry B, 2025, 129(40):10343-10352.

DOI

[20]
TITO C, MASCIARELLI S, COLOTTI G, et al. EGF receptor in organ development,tissue homeostasis and regeneration[J]. Journal of Biomedical Science, 2025, 32(1):24.

DOI

[21]
LI X D, WU Z, YUAN L B, et al. Hesperidin inhibits colon cancer progression by downregulating SLC5A1 to suppress EGFR phosphorylation[J]. Journal of Cancer, 2025, 16(3):876-887.

DOI PMID

[22]
NEWTON K, STRASSER A, KAYAGAKI N, et al. Cell death[J]. Cell, 2024, 187(2):235-256.

DOI PMID

[23]
ZHU L H, XU J X, ZHU S W, et al. Gene expression profiling analysis reveals weaning-induced cell cycle arrest and apoptosis in the small intestine of pigs[J]. Journal of Animal Science, 2014, 92(3):996-1006.

DOI PMID

[24]
MUHAMMAD T, IKRAM M, ULLAH R, et al. Retracted:hesperetin,a citrus flavonoid,attenuates LPS-induced neuroinflammation,apoptosis and memory impairments by modulating TLR4/NF-κB signaling[J]. Nutrients, 2019, 11(3):648.

DOI

[25]
YU Z L, PENG Y L, GAO J, et al. The p23 co-chaperone is a succinate-activated COX-2 transcription factor in lung adenocarcinoma tumorigenesis[J]. Science Advances, 2023, 9(26):eade0387.

[26]
SAIPRASAD G, CHITRA P, MANIKANDAN R, et al. Hesperidin alleviates oxidative stress and downregulates the expressions of proliferative and inflammatory markers in azoxymethane-induced experimental colon carcinogenesis in mice[J]. Inflammation Research, 2013, 62(4):425-440.

DOI PMID

[27]
PATTEN J, WANG K. Fibronectin in development and wound healing[J]. Advanced Drug Delivery Reviews, 2021, 170:353-368.

DOI PMID

[28]
CINAR A K, SERTTAS R, CINAR A C, et al. As shown hesperidin suppresses TGF-β2-induced proliferation and epithelial-mesenchymal transition of retinal pigment epithelial cells[J]. Journal of Molecular Histology, 2024, 56(1):10.

DOI PMID

[29]
KOVATS S. Estrogen receptors regulate innate immune cells and signaling pathways[J]. Cellular Immunology, 2015, 294(2):63-69.

DOI PMID

[30]
HU H Y, ZHANG Z Z, JIANG X Y, et al. Hesperidin anti-osteoporosis by regulating estrogen signaling pathways[J]. Molecules, 2023, 28(19):6987.

DOI

[31]
BEUMER J, CLEVERS H. Cell fate specification and differentiation in the adult mammalian intestine[J]. Nature Reviews Molecular Cell Biology, 2021, 22(1):39-53.

DOI

[32]
ZOU L J, SHAO Y R, XU Y F, et al. Transcriptome profile analysis of intestinal upper villus epithelial cells and crypt epithelial cells of suckling piglets[J]. Animals, 2022, 12(18):2324.

DOI

[33]
KUO W T, SHEN L, ZUO L, et al. Inflammation-induced occludin downregulation limits epithelial apoptosis by suppressing caspase-3 expression[J]. Gastroenterology, 2019, 157(5):1323-1337.

DOI

[34]
JOMOVA K, ALOMAR S Y, VALKO R, et al. Flavonoids and their role in oxidative stress,inflammation,and human diseases[J]. Chemico-Biological Interactions, 2025, 413:111489.

DOI

[35]
CHDA A, BENCHEIKH R. Flavonoids as G protein-coupled receptors ligands:new potential therapeutic natural drugs[J]. Current Drug Targets, 2023, 24(17):1346-1363.

DOI

[36]
SAFE S, JAYARAMAN A, CHAPKIN R S, et al. Flavonoids:structure-function and mechanisms of action and opportunities for drug development[J]. Toxicology Research, 2021, 37(2):147-162.

[37]
GUO J, HU M N, YANG M Q, et al. Inhibition mechanism of theaflavins on matrix metalloproteinase-2:inhibition kinetics,multispectral analysis,molecular docking and molecular dynamics simulation[J]. Food & Function, 2024, 15(14):7452-7467.

[38]
OLUKUNLE O F, OMOBOYEDE V, CHUKWUEMEKA P O. Network pharmacology and molecular docking-based identification of drug candidates and key targets of Allium sativum for colorectal cancer treatment[J]. Journal of Biomolecular Structure & Dynamics, 2024, 42(9):4442-4455.

[39]
FAN M Z, STOLL B, JIANG R, et al. Enterocyte digestive enzyme activity along the crypt-villus and longitudinal axes in the neonatal pig small intestine[J]. Journal of Animal Science, 2001, 79(2):371-381.

PMID

[40]
赖星, 陈庆菊, 卢昌文, 等. 日粮添加绿原酸和橙皮苷对断奶仔猪生长性能与肠道功能的影响[J]. 畜牧兽医学报, 2019, 50(3):570-580.

LAI X, CHEN Q J, LU C W, et al. The effects of dietary chlorogenic acid and hesperidin on growth performance and intestinal function in weaned piglets[J]. Acta Veterinaria et Zootechnica Sinica, 2019, 50(3):570-580. (in Chinese)

DOI

[41]
刘英, 王之盛, 周安国. 橙皮苷、绿原酸对断奶仔猪生长、抗氧化和免疫机能的影响[J]. 中国兽医学报, 2009, 29(9):1233-1236.

LIU Y, WANG Z S, ZHOU A G. Effects of hesperidin and chlorogenic acid on performance,antioxidance and immunity of weaned piglets[J]. Chinese Journal of Veterinary Science, 2009, 29(9):1233-1236. (in Chinese)

[42]
LI Y F, AN M Y, WAN S S, et al. Hesperidin enhances broiler growth performance by augmenting gastric acid secretion via the proton pump pathway[J]. Poultry Science, 2025, 104(2):104781.

DOI

Outlines

/