RESEARCH PAPER

Environmental Tolerance of Nano-Coated Porcine-Derived Bacillus subtilis PB58 and Its Improvement Effect on Intestinal Health of Mice

  • XIA Zihan , 1, 2, 3 ,
  • WANG Jiaying 1, 2, 3 ,
  • LIU Yuchun 1, 2, 3 ,
  • CAO Yang , 1, 2, 3, 4, 5, * ,
  • ZANG Yanqing , 6, *
Expand
  • 1 College of Animal Science and Technology, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Heilongjiang Key Laboratory of Efficient Utilization of Feed Resources and Nutritional Regulation in Cold Regions, Daqing 163319, China
  • 3 Daqing Engineering and Technology Research Center for Bio-Feed Development and Safe Utilization, Daqing 163319, China
  • 4 Ministry of Education Engineering Research Center for Grain By-Product Processing and Utilization, Daqing 163319, China
  • 5 Ministry of Agriculture and Rural Affairs Key Laboratory of Agricultural Green and Low-Carbon in Northeast Plain, Daqing 163319, China
  • 6 College of Food Science, Heilongjiang Bayi Agricultural University, Daqing 163319, China
*CAO Yang, professor, E-mail: ;
ZANG Yanqing, associate professor, E-mail:

Received date: 2025-09-29

  Online published: 2026-05-14

Abstract

This study aimed to investigate the environmental tolerance of nano-coated porcine-derived Bacillus subtilis PB58 and its effects on intestinal morphology, microbiota and metabolites of mice. Using nano-metal coating technology, trivalent iron ions (Fe3+), tannic acid and ferulic acid were selected for multilayer coating of porcine-derived Bacillus subtilis PB58 to prepare PB58-iron-tannic acid-ferulic acid-coated nanoparticles. The coating effect was observed by scanning electron microscopy, and the environmental tolerance of the coated PB58 was evaluated. Twelve specific pathogen-free (SPF) male BALB/c mice were randomly divided into two groups: the control group received 200 μL of LB liquid medium daily by gavage, and the coated group received 200 μL of coated PB58 bacterial suspension (1×10¹¹ CFU/mL, suspended in LB liquid medium) daily by gavage. After 25 days of gavage, indicators such as growth performance, health status and intestinal microbiota of the mice were measured. The results showed that the coating system consisting of 10 mg/mL ferric chloride solution, 30 mg/mL tannic acid solution and 4 mg/mL ferulic acid solution exhibited no toxicity to PB58. Compared with the control group, the coated group showed significantly increased survival rates under culture conditions of acidity, bile salts, high temperature, simulated gastrointestinal fluids, and ampicillin (P<0.05). Compared with the control group, the coated group exhibited significantly increased average daily gain, average daily feed intake, and serum content of interleukin-10 (IL-10) and interleukin-22 (IL-22) (P<0.05), while serum tumor necrosis factor-α (TNF-α) content was significantly decreased (P<0.05). Additionally, liver index, colon length, and intestinal microbiota α diversity indices (Ace, Chao1 and Shannon indices) were significantly increased (P<0.05), ileal villus length was increased, and the abundance of Firmicutes was enhanced in the coated group. Compared with the control group, the enriched differential metabolites in the intestine of mice in the coated group were L-valine, cinncassiol D4 2-glucoside, cis-4-carboxymethylene-but-2-en-4-olid and hulupon. Among these, L-valine, which was enriched in the pantothenate and coenzyme A biosynthesis pathway, showed a significant positive correlation with Eubacterium_coprostanoligenes_group, a bacterium belonging to the Firmicutes (P<0.05). In conclusion, the iron-tannic acid-ferulic acid coating system effectively can enhance the environmental tolerance of porcine-derived Bacillus subtilis PB58. After intervention with coated PB58, the health indicators, intestinal morphology, and composition of intestinal microbiota and metabolites in mice are improved. Therefore, coated PB58 has the potential to replace antibiotics as a functional probiotic for improving animal intestinal health.

Cite this article

XIA Zihan , WANG Jiaying , LIU Yuchun , CAO Yang , ZANG Yanqing . Environmental Tolerance of Nano-Coated Porcine-Derived Bacillus subtilis PB58 and Its Improvement Effect on Intestinal Health of Mice[J]. Chinese Journal of Animal Nutrition, 2026 , 38(5) : 3763 -3778 . DOI: 10.12418/CJAN2026.301

随着集约化畜牧业的快速发展,抗生素曾作为主要添加剂广泛应用于早期畜禽饲粮中。然而,长期滥用抗生素导致了肉产品中药物残留、致病菌耐药性增强等一系列问题,严重威胁食品安全和公共卫生。因此,开发绿色、安全、高效的抗生素替代型饲料添加剂已成为当前动物营养与养殖领域的研究热点[1]。益生菌因具有调节肠道菌群结构、增强肠道健康等功能,已逐步替代抗生素作为功能性饲料添加剂在畜牧养殖中得到广泛应用[2-3]。其中,枯草芽孢杆菌(Bacillus subtilis)作为一种典型益生菌,具有较强的抗逆性和促生长功能。研究表明,枯草芽孢杆菌能够有效提高畜禽的生长性能,改善肠道菌群平衡,并增强机体免疫力,具备在实际生产中替代抗生素的潜力,是实现饲料“减抗替抗”、推动养殖业提质增效的重要候选菌种[4]
由于益生菌在口服给药期间常表现出较差的稳定性和对胃肠道环境应激的高度敏感性,导致其数量和活性下降,这将降低最终在肠道中定植的活菌量,削弱益生效果[5],因此,保持高存活率和高效率的肠道定植对于枯草芽孢杆菌等益生菌在宿主中发挥有效功能至关重要。目前,已有大量研究表明,采用包被递送方式可增强乳杆菌在肠道中的存活与定植能力[6-7]。相较之下,针对枯草芽孢杆菌口服递送方式的研究则较少,关于包被枯草芽孢杆菌对小鼠生长和肠道健康改善情况的研究更加匮乏。基于此,本研究对自主筛选的枯草芽孢杆菌PB58菌株进行纳米包被处理后,通过灌胃方式给予小鼠,系统考察其对小鼠生长性能、肠道形态结构、肠道菌群及其代谢物的影响,旨在探索提升枯草芽孢杆菌在动物肠道内存活率的保护技术,为包被芽孢杆菌在改善小鼠生长性能、维护肠道健康方面的应用提供理论依据与数据支持。

1 材料与方法

1.1 试验材料

枯草芽孢杆菌PB58菌株(后文简称为PB58)为本实验室从断奶仔猪粪便样本中分离筛选获得[8],保存于黑龙江省寒区饲料资源高效利用与营养调控重点实验室。包被材料:无水三氯化铁(FeCl3,分析纯,辽宁泉瑞试剂有限公司)、单宁酸(TA,分析纯,上海麦克林生化科技股份有限公司)、阿魏酸(FA,纯度99%,大连美仑生物技术有限公司)。

1.2 纳米包被系统的构建及其对PB58的毒性

将PB58菌液在5 mL LB液体培养基中有氧培养24 h,菌液浓度为1×10¹¹ CFU/mL;参照Xie等[9]的方法,在PB58菌液中加入15 μL 10 mg/mL的FeCl3溶液,之后加入15 μL不同浓度(0、10、20、30、40 mg/mL)的单宁酸溶液,振荡1 min,以845×g离心5 min,磷酸盐缓冲液(PBS,pH=7.4)洗涤后,测定PB58-铁-单宁酸包被纳米颗粒的粒径,以筛选最佳单宁酸包被浓度,每个浓度设3个重复。确定最佳单宁酸溶液浓度后,选用最佳单宁酸溶液浓度并按照上述方法制备PB58-铁-单宁酸包被纳米颗粒,然后加入15 μL不同浓度的(0、1、2、4、6 mg/mL)阿魏酸溶液,振荡1 min,以845×g离心5 min,PBS(pH=7.4)洗涤后,通过测定PB58-铁-单宁酸-阿魏酸包被纳米颗粒的Zeta电位,确定最佳阿魏酸溶液浓度,每个浓度设3个重复。
毒性检测试验共设4组。未包被PB58组:在2.5 mL PB58菌液中加入2.5 mL LB液体培养基;PB58-铁-单宁酸组:在2.5 mL PB58菌液中加入2.5 mL含15 μL FeCl3溶液(10 mg/mL)、15 μL单宁酸溶液(30 mg/mL)的LB液体培养基;PB58-阿魏酸组:在2.5 mL PB58菌液中加入2.5 mL含15 μL阿魏酸溶液(4 mg/mL)的LB液体培养基;PB58-铁-单宁酸-阿魏酸组:在2.5 mL PB58菌液中加入2.5 mL含15 μL FeCl3溶液(10 mg/mL)、15 μL单宁酸溶液(30 mg/mL)、15 μL阿魏酸溶液(4 mg/mL)的LB液体培养基。各组均在有氧条件下培养12 h,随后记录活菌数并计算存活率,每组设3个重复。存活率计算公式为:
存活率(%)=(处理后活菌数/初始活菌数)×100。
式中:初始活菌数为试验开始时原始PB58菌液的活菌数。

1.3 包被PB58对不良生长环境的耐受性

耐受性试验共设2组,即未包被组和包被组。未包被组使用的菌液是将20 μL PB58菌液接种于2 mL LB液体培养基中,有氧培养24 h制得。包被组使用的菌液则是参照优化后的包被条件,依次向上述PB58菌液中加入15 μL FeCl3溶液(10 mg/mL)、15 μL单宁酸溶液(30 mg/mL)及15 μL阿魏酸溶液(4 mg/mL),振荡混匀1 min后洗涤2次制得。
耐受性试验设置如下处理条件:将2组菌液分别与4 mL不同pH(3、4、5)的LB液体培养基混合,有氧培养12 h;将2组菌液分别与4 mL含不同浓度(0.2%、0.4%、0.6%)胆盐的LB液体培养基混合,有氧培养12 h;将2组菌液分别置于20、40、60 ℃水浴中处理30 min,处理结束后再将该菌液与4 mL未处理的LB液体培养基混合,有氧培养12 h;将2组菌液分别与4 mL含人工模拟胃液、人工模拟肠液或32 μg/mL氨苄西林的LB液体培养基混合,有氧培养4 h。待各处理培养结束后,测定各组活菌数并计算存活率,计算方法同1.2。每组设3个重复。

1.4 动物试验

1.4.1 试验设计

动物试验严格按照国家卫生研究院及黑龙江八一农垦大学实验动物护理和使用指南实行,已通过黑龙江八一农垦大学动物伦理委员会审查批准(伦理审批号:DWKJXY2023131)。
8周龄无特定病原体(SPF)级雄性BALB/c小鼠共12只,体重20~22 g,购自长胜生物技术有限公司;小鼠饲粮购于辽宁省沈阳市前民动物实验饲料厂,该饲粮满足GB 14924.1—2001、GB 14924.2—2001、GB 14924.3—2010要求。
所有小鼠在隔离环境中适应性饲养7 d,期间自由采食与饮水。适应性饲养结束后,将12只小鼠称重后随机分为2组,即对照组和包被组,每组6只。每日09:00,对照组小鼠灌胃200 μL LB液体培养基,包被组小鼠灌胃200 μL包被PB58菌液(1×10¹¹ CFU/mL,悬浮介质为LB液体培养基)。饲养条件控制如下:每日12 h光照,温度维持于(22±2) ℃,相对湿度为(45±10)%。试验期共25 d。

1.4.2 生长性能测定

试验期间记录小鼠的喂料量、剩料量、初始体重和终末体重,计算小鼠的平均日增重、平均日采食量,计算公式为:

平均日增重=(终末体重-初始体重)/试验天数;

平均日采食量=总耗料量/试验天数。

1.4.3 血清免疫因子含量测定

灌胃试验结束后,小鼠经腹腔注射50 mg/kg BW戊巴比妥钠麻醉,麻醉之后在腹主动脉抽取血液,利用离心机845×g离心10 min后吸取血清,使用酶联免疫吸附测定(ELISA)试剂盒(上海森兴研生物技术有限公司)测定血清中白细胞介素-6(IL-6)、白细胞介素-10(IL-10)、白细胞介素-22(IL-22)、肿瘤坏死因子-α(TNF-α)的含量。

1.4.4 结肠长度、脏器指数测定及肝脏、肾脏、回肠组织形态结构观察

采集血液后处死所有小鼠,取结肠、回肠、肝脏、肾脏,测定结肠长度,称量肝脏、肾脏重量,计算小鼠脏器指数,计算公式为:

脏器指数=(脏器重量/小鼠体重)×100。

取小鼠肝脏、肾脏及回肠组织,制作石蜡切片,进行苏木精-伊红(HE)染色,于光学显微镜下观察组织形态结构。

1.4.5 肠道菌群分析

小鼠直肠粪便样本采集之后马上置于-80 ℃超低温冰箱保存,后续采用十六烷基三甲基溴化铵(CTAB)法提取粪便样本中微生物基因组总DNA,并就16S rRNA基因的V3~V4高变区进行特异性PCR扩增,扩增产物经琼脂糖凝胶电泳验证后,切胶回收纯化后构建测序文库,借助Illumina NovaSeq 6000平台开展双端250 bp(PE250)的高通量测序。
生物信息学分析依照QIIME2(v2023.9)流程进行:首先使用Cutadapt(v2.4)切除引物序列,随后采用DADA2算法进行去噪,获得高分辨率的扩增子序列变体(ASV)。在序列抽平后,对ASV进行物种分类学注释。在群落多样性评估方面,分别计算Ace、Chao1、Shannon和Simpson指数,用于表征α多样性;基于Bray-Curtis距离矩阵,采用主坐标分析(PCoA)可视化样本间的β多样性;通过物种组成堆叠图解析群落结构;差异物种分析采用Wilcoxon秩和检验(P<0.05,Bonferroni校正),并结合韦恩图与LEfSe分析直观展示菌群的结构特征。

1.4.6 肠道代谢组学分析

收集小鼠的小肠内容物,保存于-80 ℃冰箱备用。采用基于液相色谱-串联质谱(LC-MS/MS)的非靶向代谢组学方法,在Q Exactive质谱仪(美国Thermo Fisher Scientific公司)上进行数据采集。原始数据经预处理后,通过与HMDB、MassBank、LipidMaps、MzCloud及KEGG等公共数据库进行比对,实现对代谢物的鉴定与注释。

1.5 统计分析

采用SPSS 27.0软件对数据进行统计分析,结果以“平均值±标准差”表示。菌株包被构建及毒性测定相关指标采用单因素方差分析(one-way ANOVA),并结合Duncan氏法进行组间多重比较;菌株耐受性评估及小鼠各项检测指标采用独立样本t检验进行2组间差异比较;采用Pearson相关分析评估肠道差异菌群与代谢物之间的相关性,并通过相关性热图进行可视化展示。P<0.05表示差异有统计学意义。

2 结果与分析

2.1 纳米包被系统的构建及其毒性

表1所示,当单宁酸溶液浓度为30 mg/mL时,PB58-铁-单宁酸包被纳米颗粒粒度最低,并显著低于其他浓度(P<0.05),说明此时PB58-铁-单宁酸包被纳米颗粒的结构最紧密。
表1 单宁酸溶液浓度对纳米颗粒粒径的影响

Table 1 Effects of TA solution concentration on particle size of nanoparticlesnm

项目
Item
单宁酸溶液浓度 TA solution concentration/(mg/mL) P
P-value
0 10 20 30 40
粒度 Particle size 868.00±48.00c 614.00±34.04b 578.00±26.00b 507.67±23.03a 604.67±23.46b <0.001

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。表2表3同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as Table 2 and Table 3.

表2所示,当阿魏酸溶液浓度为4 mg/mL时,纳米颗粒Zeta电位的绝对值最大,显著大于除6 mg/mL外的其他浓度(P<0.05),说明此时PB58-铁-单宁酸-阿魏酸包被纳米颗粒的稳定性最强。
表2 阿魏酸溶液浓度对纳米颗粒Zeta电位的影响

Table 2 Effects of FA solution concentration on Zeta potential of nanoparticlesmV

项目
Item
阿魏酸溶液浓度 FA solution concentration/(mg/mL) P
P-value
0 1 2 4 6
Zeta电位 Zeta potential -11.87±0.40a -14.80±0.70b -16.47±0.85c -18.37±0.75d -17.17±0.55cd <0.001
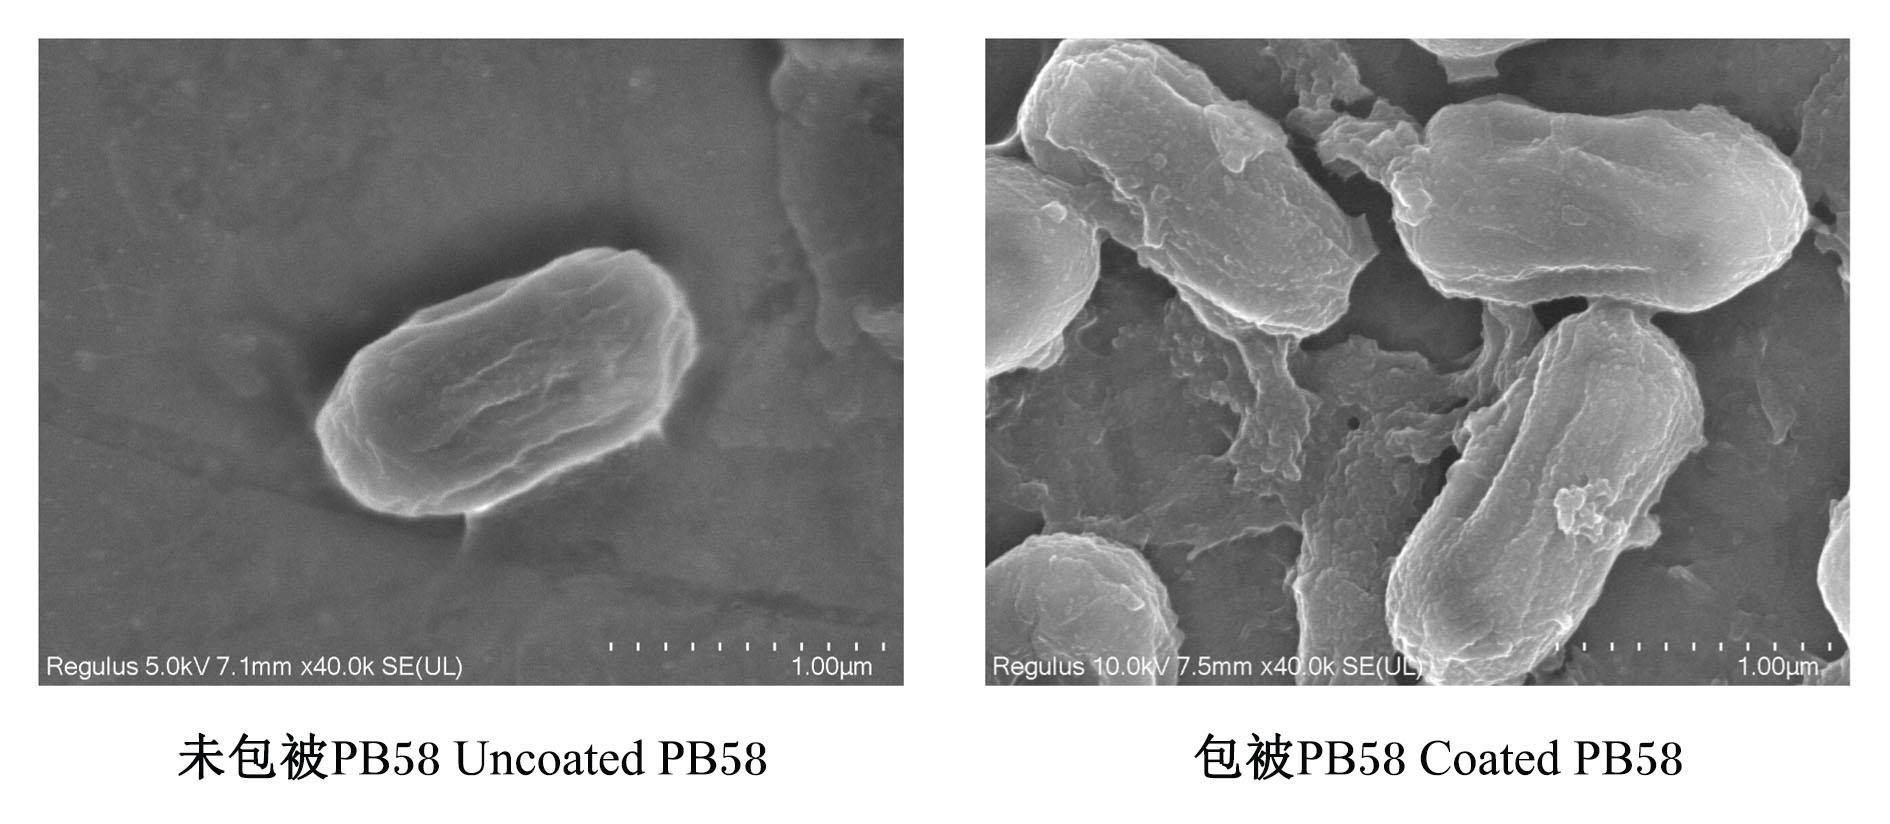
根据以上结果可知,将FeCl3溶液浓度固定在10 mg/mL时,选用浓度为30 mg/mL的单宁酸溶液和浓度为4 mg/mL的阿魏酸溶液对PB58进行包被,此时包被系统最具稳定性。采用扫描电镜对包被和未包被PB58进行检测,如图1所示,未包被PB58菌体表面粗糙,有明显突起,菌体形态明显,而包被PB58菌体被包覆,表面有颗粒状附着物,进一步证明包被成功。
图1 包被和未包被PB58扫描电镜图

Fig.1 Scanning electron microscopy images of coated and uncoated PB58 (40 000×)

表3所示,PB58-铁-单宁酸-阿魏酸组和PB58-阿魏酸组PB58的存活率与未包被PB58组无显著差异(P>0.05),说明铁-单宁酸-阿魏酸包被系统对PB58无毒性。
表3 铁-单宁酸-阿魏酸包被系统对PB58存活率的影响

Table 3 Effects of Fe-TA-FA coating system on survival rate of PB58%

项目
Item
未包被PB58组
Uncoated PB58 group
PB58-阿魏酸组
PB58-FA group
PB58-铁-单宁酸组
PB58-Fe-TA group
PB58-铁-单宁酸-
阿魏酸组
PB58-Fe-TA-FA group
P
P-value
存活率
Survival rate
100.00±2.89b 96.14±0.99b 88.33±0.75a 95.15±0.95b <0.001

2.2 包被系统对PB58环境耐受性的影响

表4中列出了未包被组和包被组PB58在不同环境中的存活率,可反映包被系统对PB58环境耐受性的影响。
表4 包被系统对PB58环境耐受性的影响

Table 4 Effects of coating system on environmental tolerance of PB58%

项目
Items
未包被组存活率
Survival rate of uncoated group
包被组存活率
Survival rate of coated group
P
P-value
酸性 Acidity
pH 3 54.08±0.73 57.57±0.07 0.001
pH 4 58.52±0.88 64.16±0.04 <0.001
pH 5 88.74±0.61 92.32±0.63 0.002
胆盐浓度 Bile salt concentration/%
0.2 88.43±1.13 93.79±0.55 0.002
0.4 86.41±0.62 91.93±0.52 <0.001
0.6 80.12±0.97 89.49±0.95 <0.001
温度 Temperature/℃
20 87.27±0.60 88.87±0.95 0.069
40 79.10±0.40 82.70±0.30 <0.001
60 51.60±1.05 65.37±1.15 <0.001
模拟体内 In vivo simulation
人工模拟肠液 ASIF 67.70±1.02 79.79±1.10 <0.001
人工模拟胃液 ASGF 49.16±0.71 59.95±1.01 <0.001
32 μg/mL氨苄西林 32 μg/mL Amp 11.89±0.43 46.04±0.47 <0.001
在pH分别为3、4、5的环境下,包被组的存活率均显著高于未包被组(P<0.05),证明包被系统可以在酸性环境下对PB58进行保护。
未包被组和包被组PB58的存活率均随胆盐浓度(0.2%、0.4%、0.6%)的升高而下降,但在同一胆盐浓度下,包被组的存活率均显著高于未包被组(P<0.05),证明包被系统在胆盐环境中对PB58也具有保护作用。
温度耐受性结果显示,在20 ℃时,未包被组和包被组PB58的存活率无显著差异(P>0.05),均达到87%以上;但在40和60 ℃时,包被组的存活率显著高于未包被组(P<0.05),表明在高温条件下包被系统对PB58起到了有效的保护作用。
在人工模拟胃液、人工模拟肠液环境中,包被组PB58的存活率均显著高于未包被组(P<0.05),且在经人工模拟肠液、人工模拟胃液处理后,包被组PB58的存活率仍分别高达79.79%和59.95%,证明包被系统增强了PB58对模拟消化液的耐受性,有效削弱了模拟消化液对PB58的侵蚀作用。
经32 μg/mL氨苄西林处理后,相比于未包被组,包被组PB58的存活率显著提高(P<0.05),表明包被系统可以提高PB58在抗生素干预环境下的活性。
由上述模拟体内试验结果可知,未包被PB58在模拟体内环境中存活率较低,为了更准确研究包被PB58对小鼠生长性能及肠道健康的影响,避免因菌活数不足而干扰结果,后续小鼠试验仅选择包被PB5对小鼠进行灌胃,不再单独设置未包被PB58组。

2.3 包被PB58对小鼠生长性能及肠道健康的影响

2.3.1 包被PB58对小鼠生长性能的影响

表5可知,相较于对照组,包被组小鼠的初始体重与终末体重未表现出显著差异(P>0.05),但包被组小鼠的平均日增重及平均日采食量均显著提升(P<0.05),表明在相同饲养周期内包被PB58提升了小鼠的采食量和体重增长速率。
表5 包被PB58对小鼠生长性能的影响

Table 5 Effects of coated PB58 on growth performance of mice

项目 Items 对照组 CON group 包被组 Coated group PP-value
初始体重 IBW/g 21.73±0.20 21.47±0.15 0.139
终末体重 FBW/g 23.00±0.30 23.40±0.10 0.094
平均日增重 ADG/(g/d) 0.05±0.02 0.08±0.01 0.011
平均日采食量 ADFI/(g/d) 4.18±0.08 4.58±0.20 0.001

2.3.2 包被PB58对小鼠血清免疫因子含量的影响

表6可知,包被组小鼠血清中抗炎因子IL-10和IL-22的含量显著高于对照组(P<0.05),促炎因子TNF-α的含量显著低于对照组(P<0.05),炎性因子IL-6的含量在2组间无显著差异(P>0.05)。
表6 包被PB58对小鼠血清免疫因子含量的影响

Table 6 Effects of coated PB58 on serum immune factor contents of miceng/L

项目 Items 对照组 CON group 包被组 Coated group PP-value
白细胞介素-6 IL-6 42.67±11.34 26.65±13.74 0.052
肿瘤坏死因子-α TNF-α 992.12±117.16 760.86±137.38 0.011
白细胞介素-10 IL-10 221.74±23.55 258.47±25.07 0.026
白细胞介素-22 IL-22 145.69±28.57 185.64±22.30 0.022

2.3.3 包被PB58对小鼠脏器指数、结肠长度及回肠、肝脏和肾脏组织形态的影响

表7可知,与对照组相比,包被组小鼠的肝脏指数显著增加(P<0.05),结肠长度显著增长(P<0.05),肾脏指数无显著变化(P>0.05)。
表7 包被PB58对小鼠脏器指数和结肠长度的影响

Table 7 Effects of coated PB58 on organ indexes and colon length of mice

项目 Items 对照组 CON group 包被组Coated group PP-value
肾脏指数 Kidney index/% 1.61±0.08 1.61±0.10 0.997
肝脏指数 Liver index/% 4.77±0.32 5.30±0.26 0.010
结肠长度 Colon length/cm 5.33±0.50 6.62±0.65 0.003
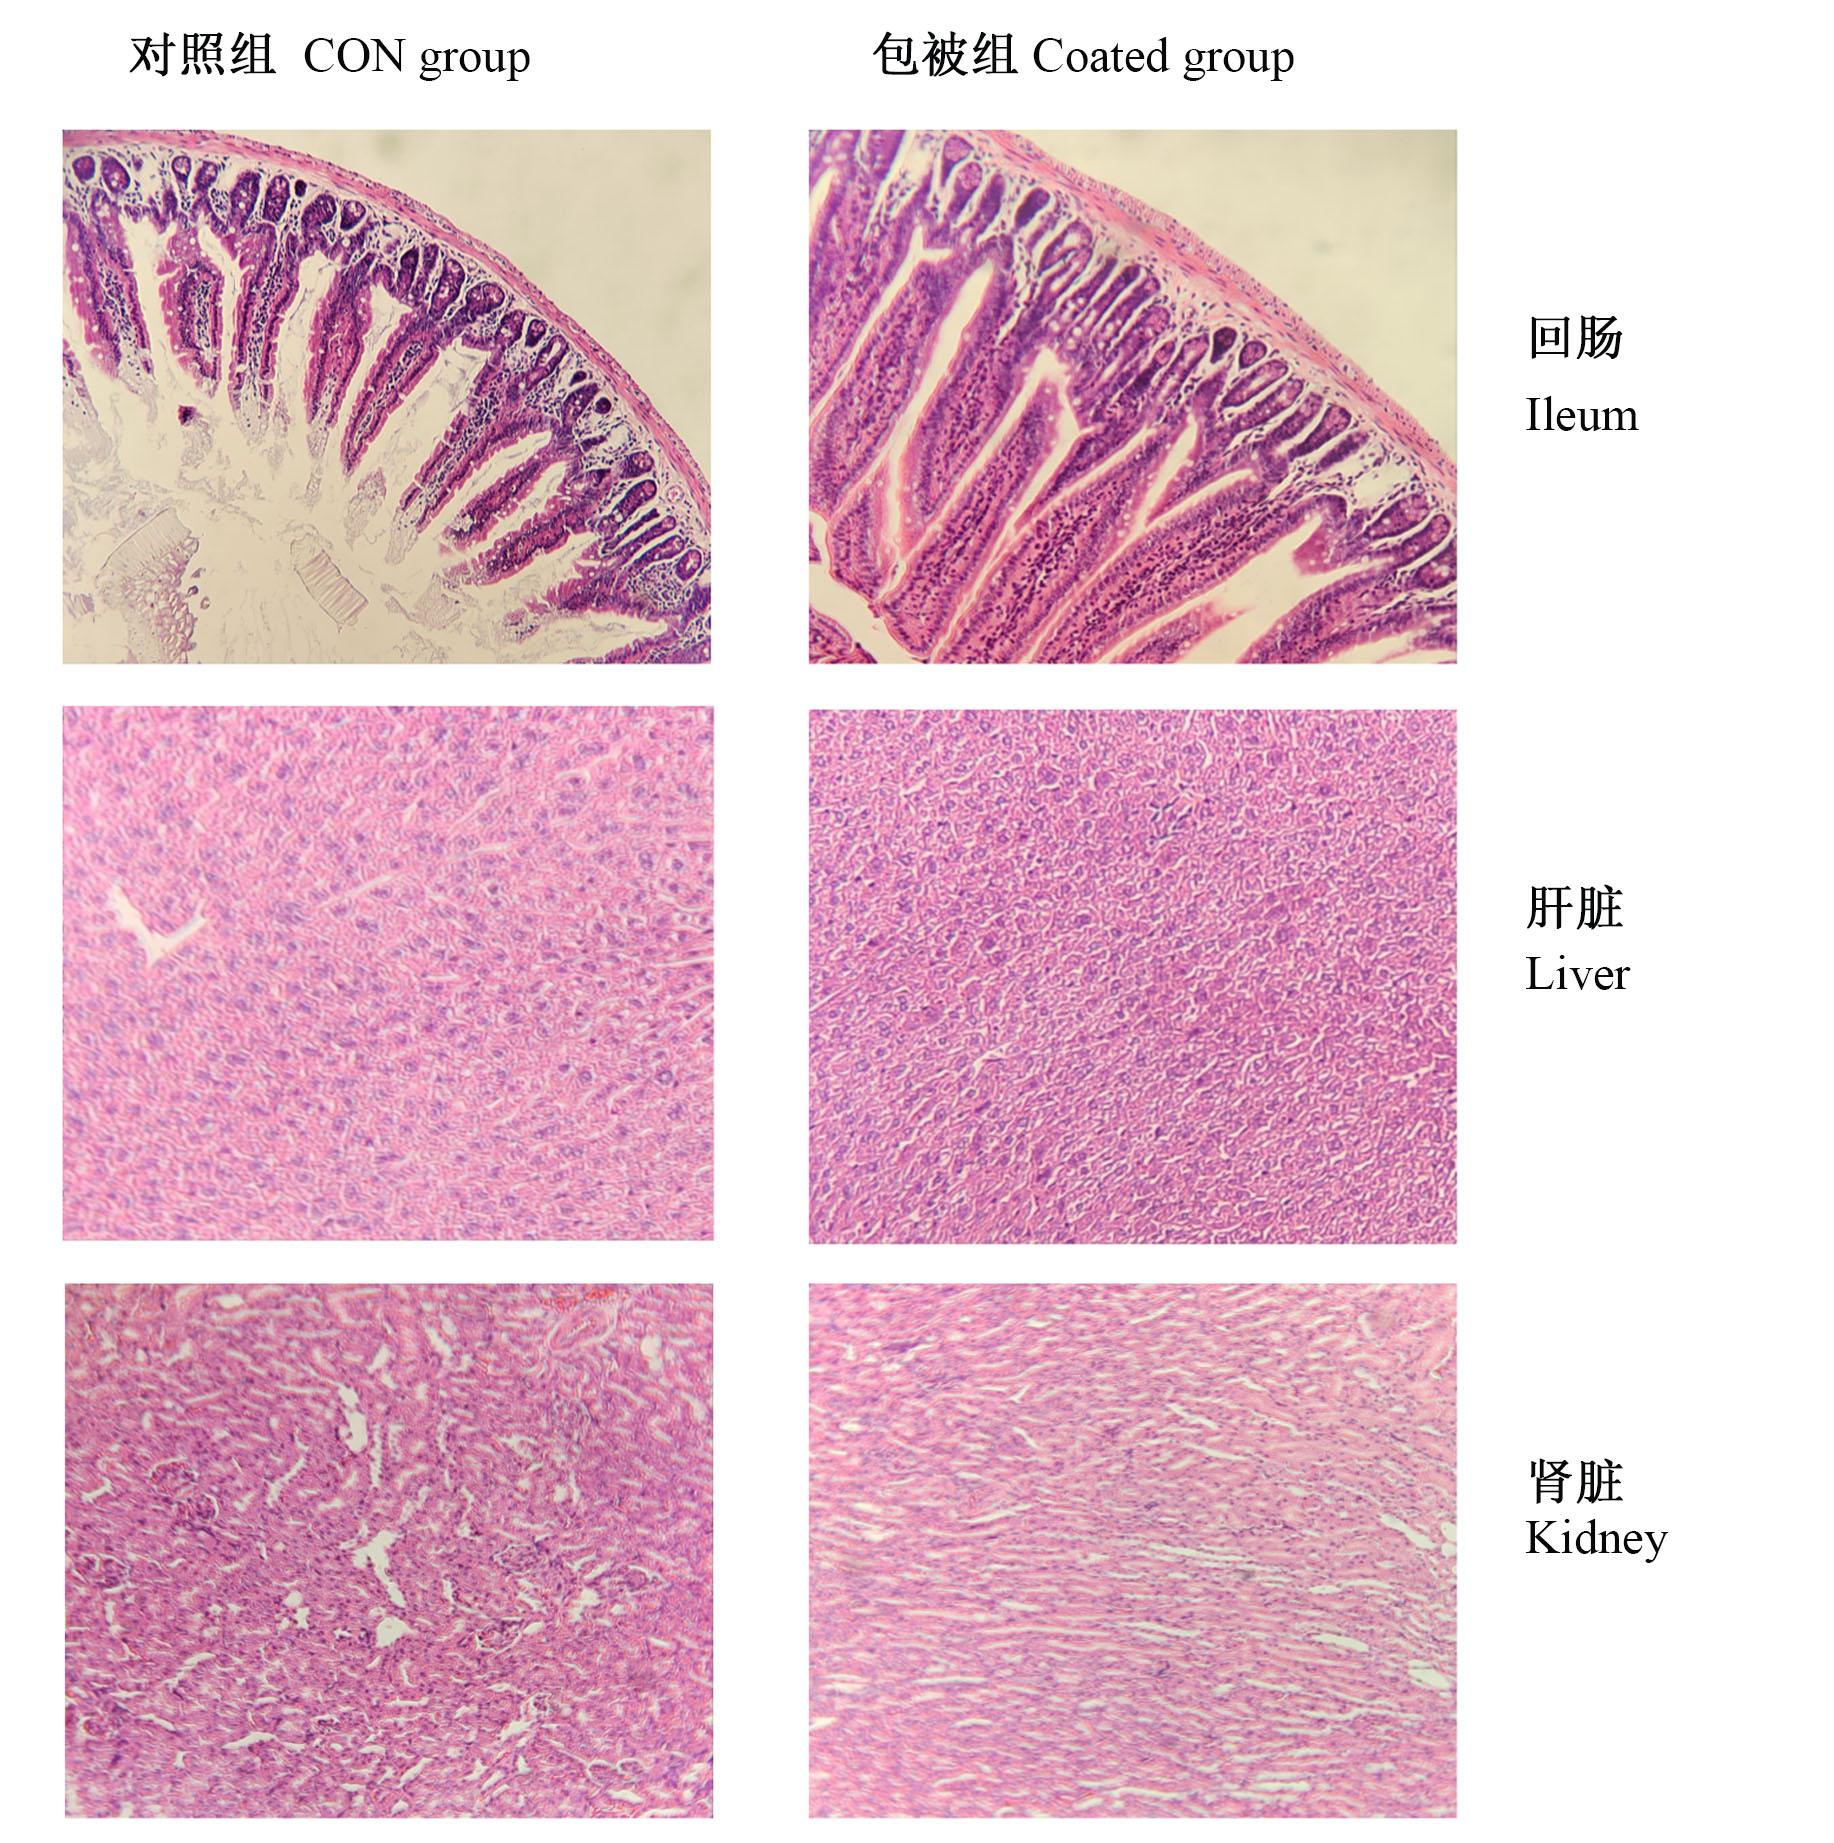
图2所示,相比于对照组,包被组小鼠的回肠和肝脏组织形态得到改善,其回肠绒毛增长,肠黏膜层细胞分布紧密,肝脏实质更均匀致密,肾脏组织形态未见明显变化。
图2 包被PB58对小鼠回肠、肝脏和肾脏组织形态的影响(苏木精-伊红染色)

Fig.2 Effects of coated PB58 on histomorphology of ileum, liver and kidney in mice (HE staining, 50×)

2.3.4 包被PB58对小鼠肠道菌群的影响

表8可知,相比于对照组,包被组小鼠肠道菌群的Ace、Chao1和Shannon指数显著升高(P<0.05),Simpson指数无显著变化(P>0.05),表明包被PB58可有效提升小鼠肠道菌群的物种丰富度与多样性。
表8 包被PB58对小鼠肠道菌群α多样性的影响

Table 8 Effects of coated PB58 on intestinal microbiota α diversity of mice

项目 Items 对照组 CON group 包被组 Coated group PP-value
Ace指数 Ace index 402.58±67.02 495.11±20.98 0.039
Chao1指数 Chao1 index 401.33±67.82 494.53±26.27 0.043
Shannon指数 Shannon index 6.07±0.34 6.57±0.12 0.033
Simpson指数 Simpson index 0.96±0.01 0.97±0.01 0.172
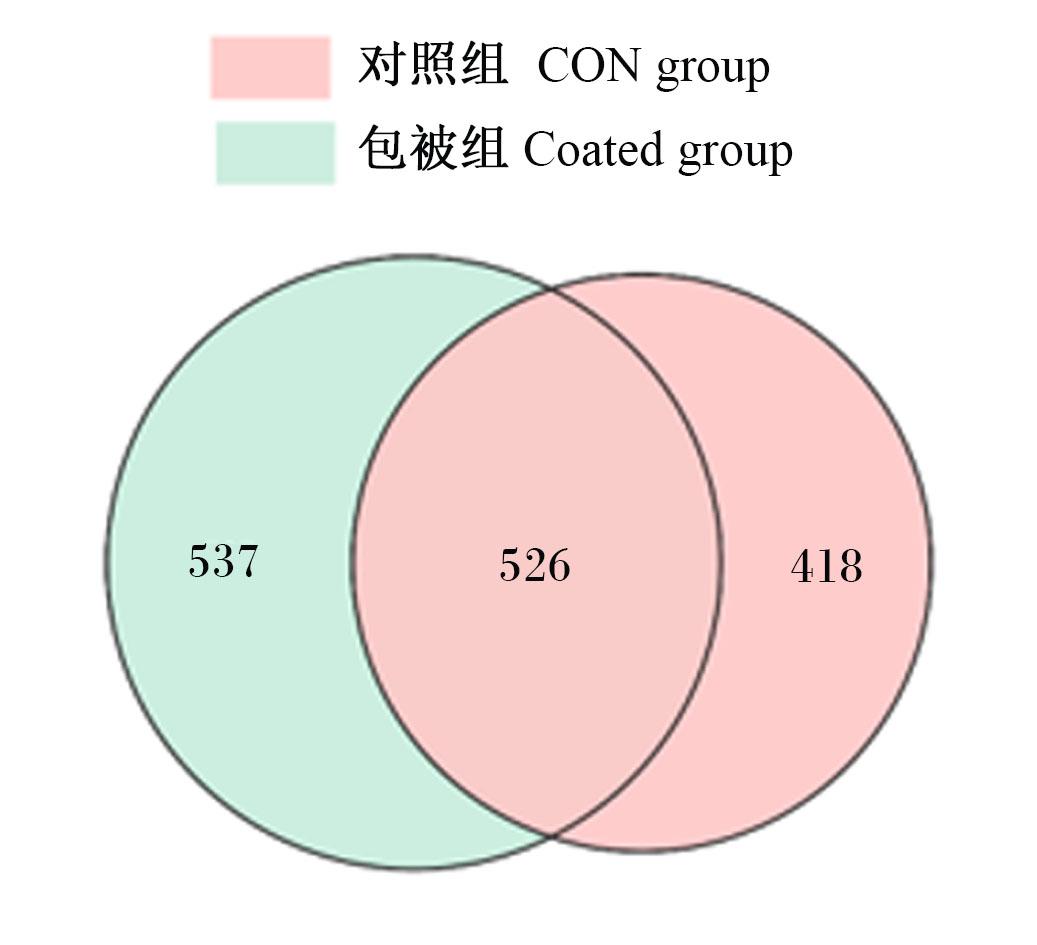
图3为2组小鼠肠道菌群ASV分布的韦恩图,对照组与包被组共有的ASV数量为526个,包被组特有的ASV数量为537个,对照组特有的ASV数量为418个;相比于对照组,包被组小鼠肠道菌群的特有ASV数量更多。
图3 小鼠肠道菌群ASV分布的韦恩图

Fig.3 Venn diagram of ASV distribution in intestinal microbiota of mice

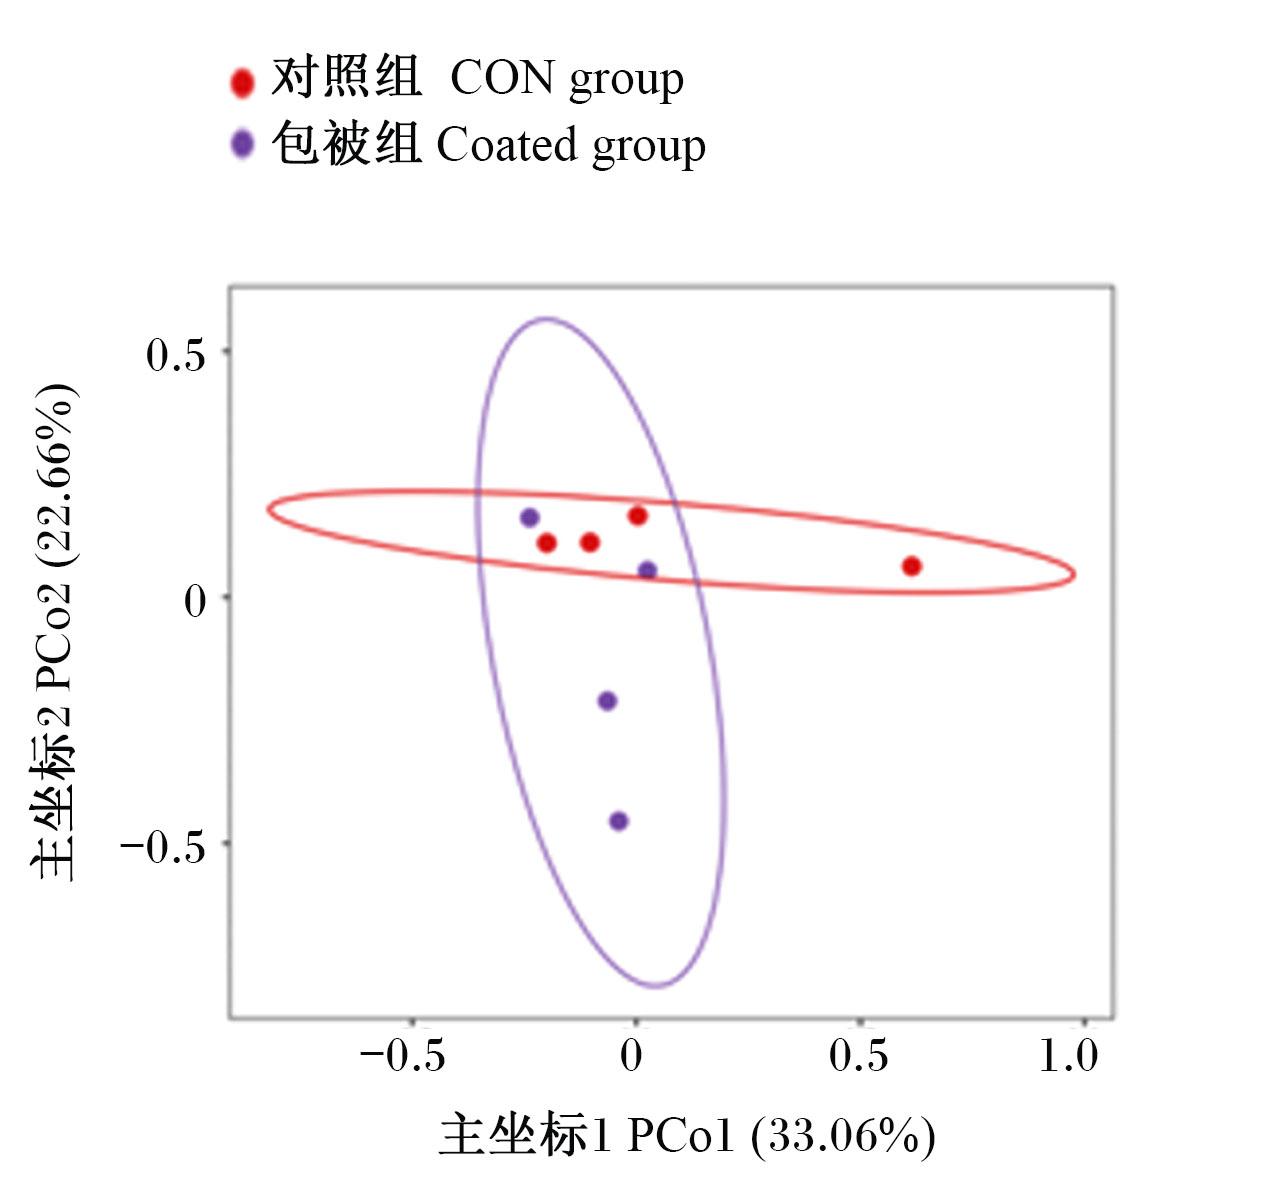
图4为2组小鼠肠道菌群PCoA图,2组样本出现一定的分离趋势,组内样本聚集性较好,说明包被PB58改变了小鼠肠道菌群的群落结构。
图4 小鼠肠道菌群PCoA图

Fig.4 PCoA plot of intestinal microbiota in mice

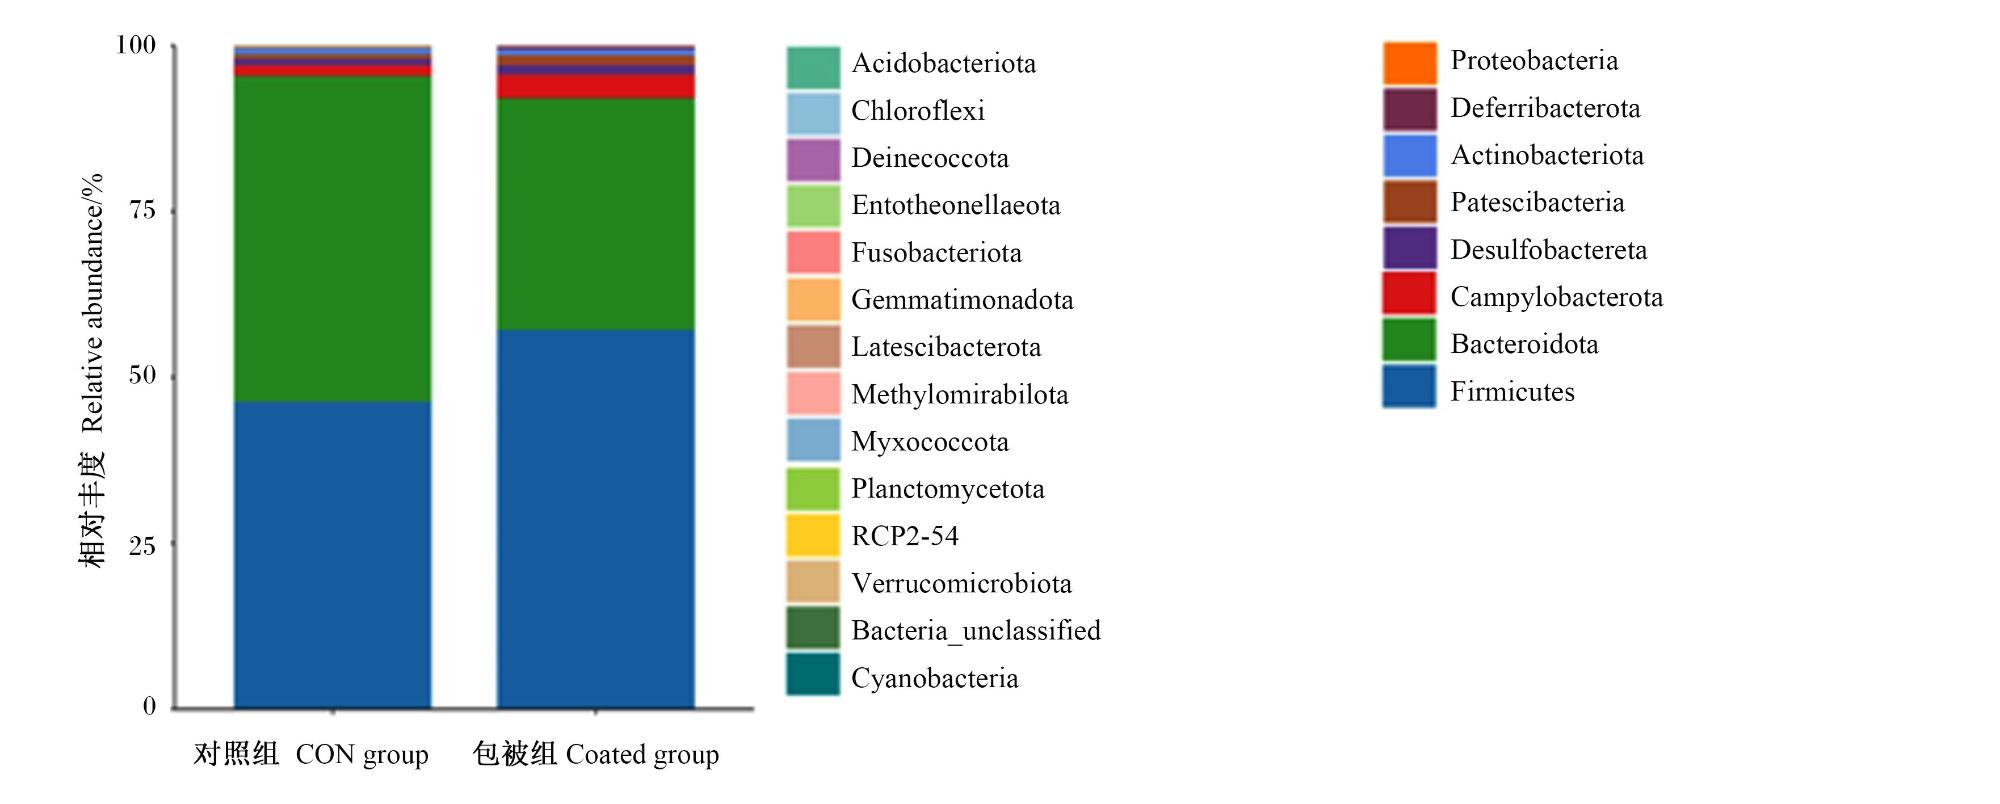
图5展示了对照组与包被组小鼠肠道菌群在门水平的物种组成,与对照组相比,包被组小鼠肠道菌群中厚壁菌门(Firmicutes)的相对丰度明显增加。
图5 小鼠肠道菌群门水平物种组成

Acidobacteriota:酸杆菌门;Chloroflexi:绿弯菌门;Deinecoccota:奇异球菌;Entotheonellaeota:覆壁菌门;Fusobacteriota:梭杆菌门;Gemmatimonadota:芽单胞菌门;Latescibacterota:迟杆菌门;Methylomirabilota:甲基奇迹菌门;Myxococcota:黏球菌门;Nitrospirota:硝化螺旋菌门;Planctomycetota:浮霉菌门;Verrucomicrobiota:疣微菌门;Cyanobacteria:蓝细菌门;Proteobacteria:变形菌门;Deferribacterota:脱铁杆菌门;Actinobacteriota:放线菌门;Patescibacteria:髌骨菌门;Desulfobactereta:脱硫杆菌门;Campylobacterota:弯曲杆菌门;Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门。

Fig.5 Intestinal microbiota composition at phylum level in mice

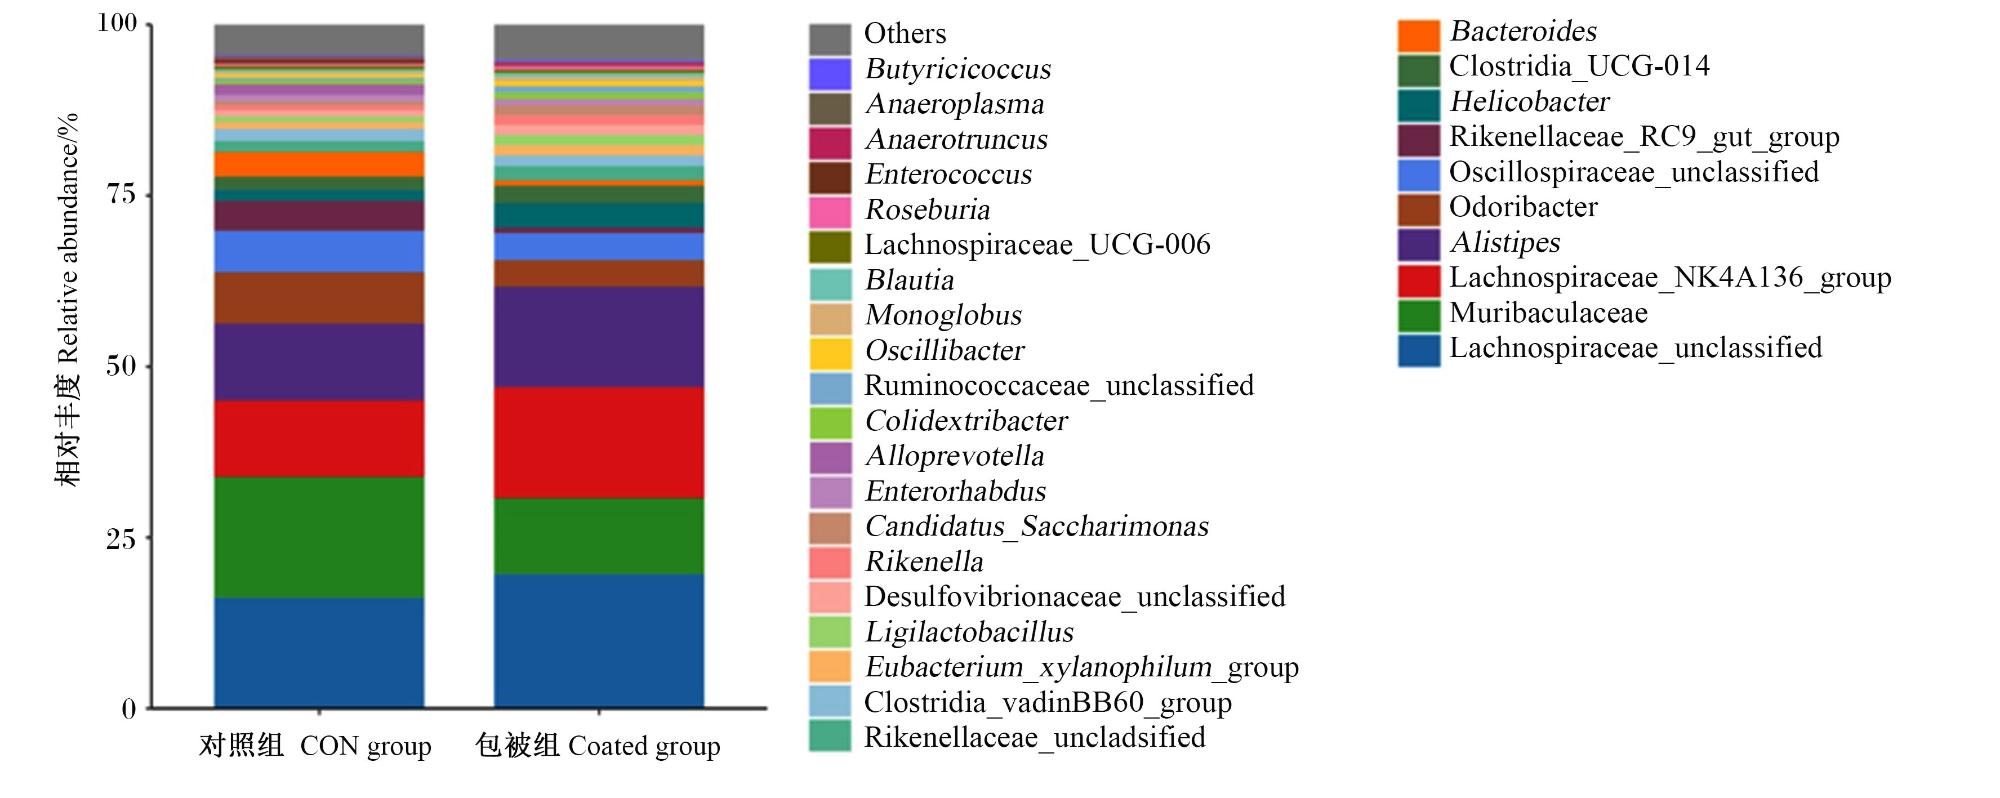
图6展示了对照组与包被组小鼠肠道菌群在属水平的物种组成。与对照组相比,包被组小鼠肠道菌群中未分类的毛螺菌科(Lachnospiraceae_unclassified)、另枝菌属(Alistipes)、嗜木聚糖真杆菌群(Eubacterium_xylanophilum_group)的相对丰度明显增加,未分类的颤螺旋菌科(Oscillospiraceae_unclassified)的相对丰度明显降低。
图6 小鼠肠道菌群属水平物种组成

Others:其他;Butyricicoccus:丁酸球菌属;Anaeroplasma:厌氧支原体属;Anaerotruncus:厌氧截形菌属;Enterococcus:肠球菌属;Roseburia:罗斯氏菌属;Lachnospiraceae_UCG-006:毛螺菌科UCG-006;Blautia:布劳特氏菌属;Monoglobus:单球菌属;Oscillibacter:颤杆菌属;Ruminococcaceae_unclassified:未分类的瘤胃球菌科;Colidextribacter:共栖杆菌属;Alloprevotella:拟普雷沃氏菌属;Enterorhabdus:肠杆状菌属;Candidatus_Saccharimonas:候选糖单胞菌属;Rikenella:理研菌属;Desulfovibrionaceae_unclassified:未分类的脱硫弧菌科;Ligilactobacillus:联合乳杆菌属;Eubacterium_xylanophilum_group:嗜木聚糖真杆菌群;Rikenellaceae_uncladsified:理研菌科未分类属;Bacteroides:拟杆菌属;Clostridia_UCG-014:梭菌纲UCG-014;Helicobacter:螺杆菌属;Oscillospiraceae_unclassified:未分类的颤螺旋菌科;Alistipes:另枝菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Lachnospiraceae_unclassified:未分类的毛螺菌科;Muribaculaceae:鼠杆菌科。

Fig.6 Intestinal microbiota composition at genus level in mice

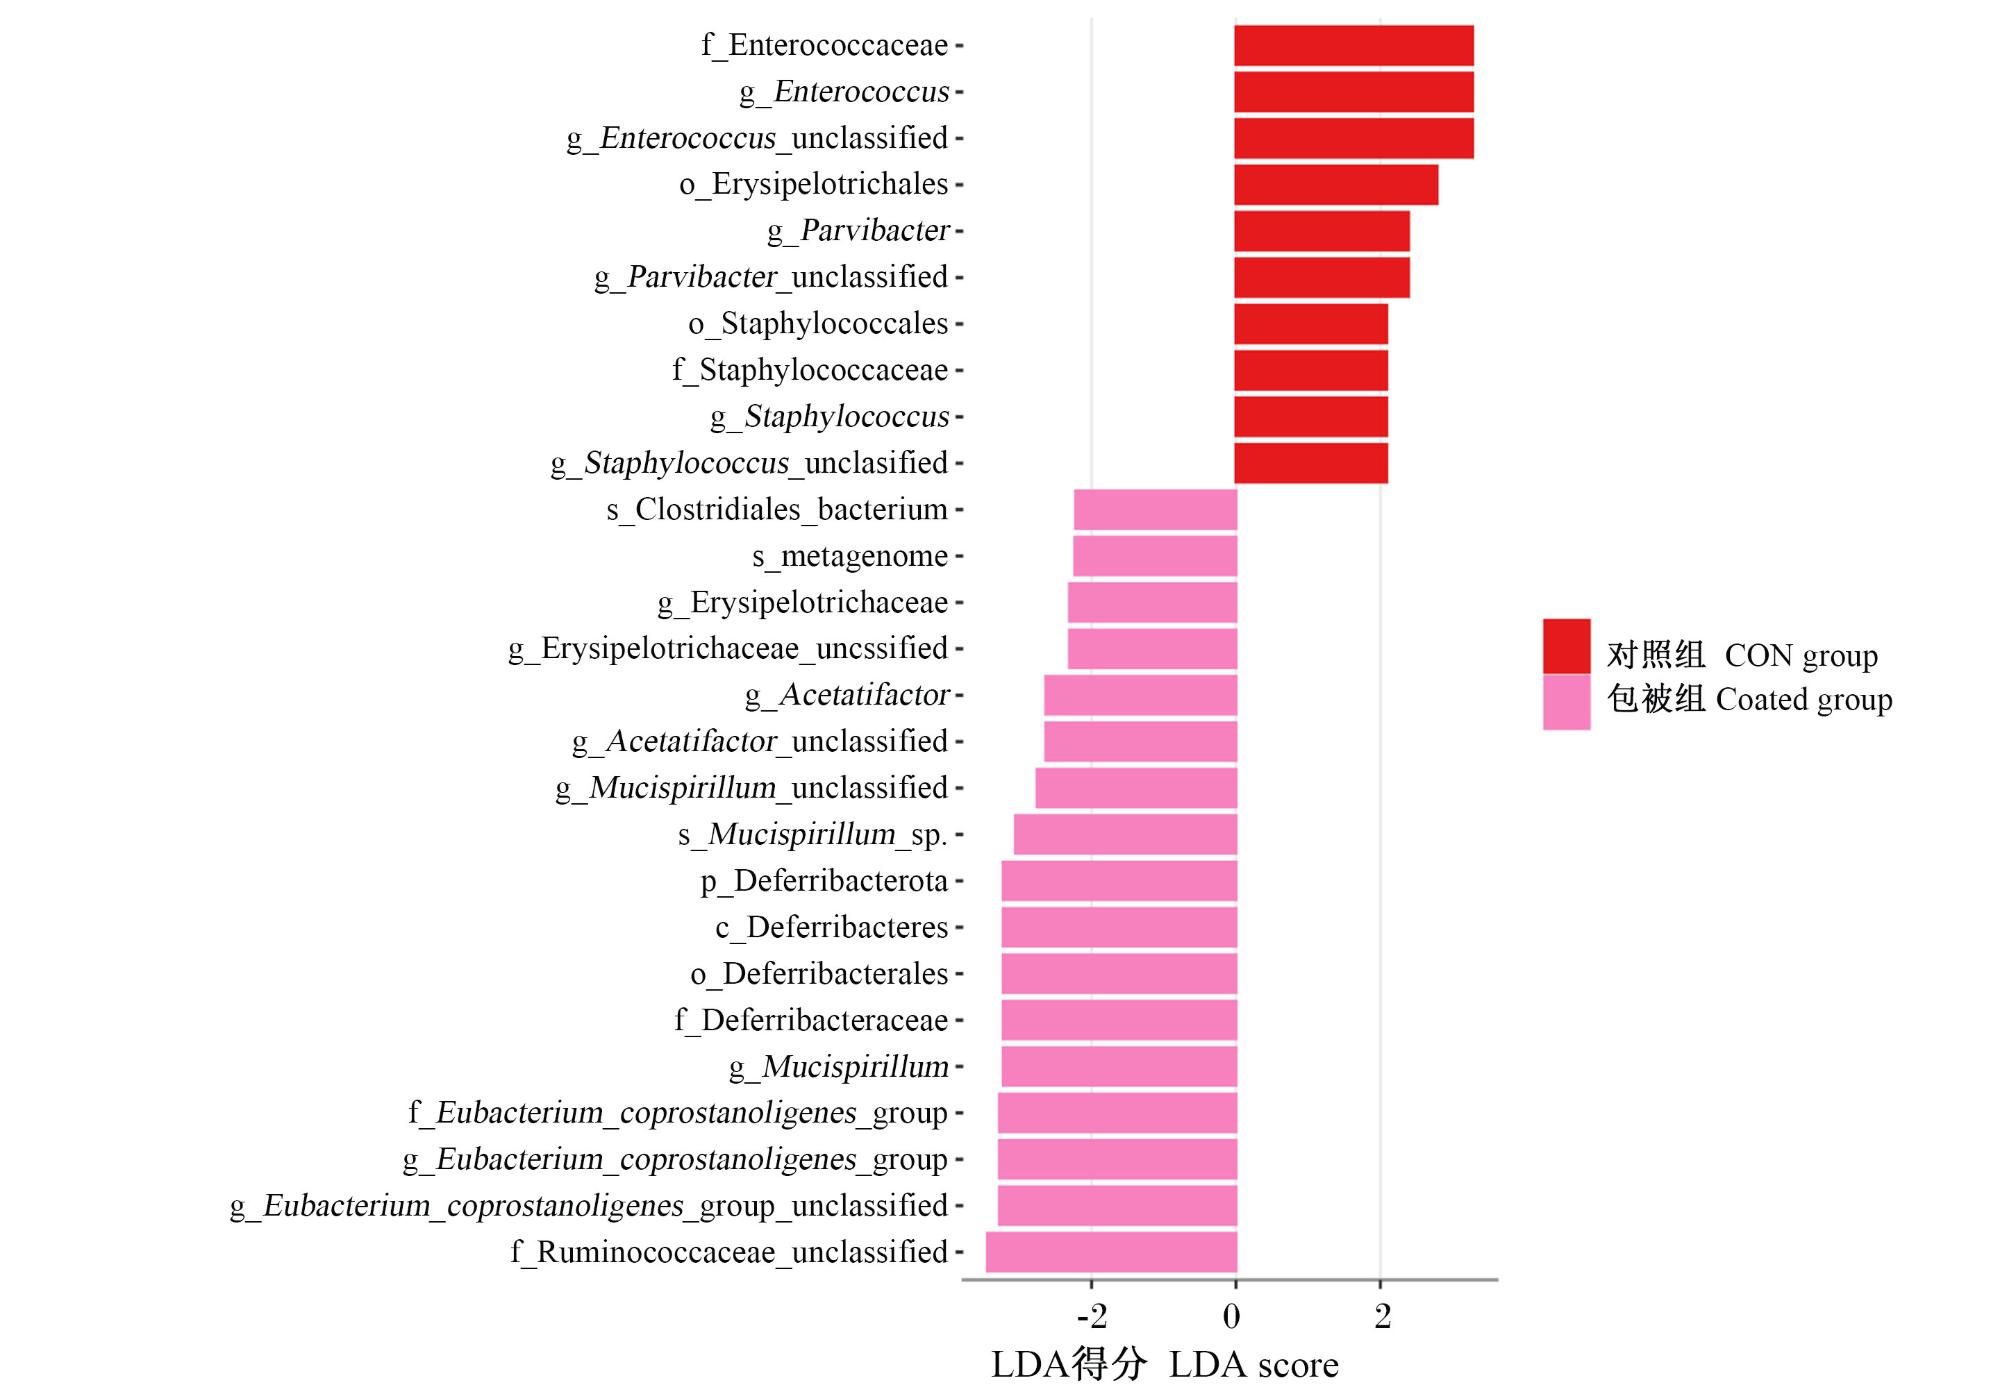
图7所示的LEfSe分析显示了包被组和对照组小鼠肠道菌群中的差异菌群(LDA阈值设定为2.0,P<0.05),给小鼠灌胃包被PB58后,其肠道菌群结构出现特异性变化,未分类的瘤胃球菌科(Ruminococcaceae_unclassified)、产粪甾醇真杆菌群(Eubacterium_coprostanoligenes_group)、黏螺菌属(Mucispirillum)、脱铁杆菌科(Deferribacteraceae)、产醋菌属(Acetatifactor)等差异菌群的相对丰度提高。
图7 小鼠肠道菌群的物种差异分析

p_、c_、o_、f_、g_和s_是物种分类学注释的标准化前缀,代表的分类学水平分别为门、纲、目、科、属和种。图10同。p_, c_, o_, f_, g_and s_are standardized prefixes for taxonomic annotation, representing the taxonomic levels of phylum, class, order, family, genus and species, respectively. The same as Fig.10.

Enterococcaceae:肠球菌科;Enterococcus:肠球菌属;Enterococcus_unclassified:未分类的肠球菌属;Erysipelotrichales:丹毒丝菌目;Parvibacter:小杆菌属;Parvibacter_unclassified:未分类的小杆菌属;Staphylococcales:葡萄球菌目;Staphylococcaceae:葡萄球菌科;Staphylococcus:葡萄球菌属;Staphylococcus_unclasified:未分类的葡萄球菌属;Clostridiales_bacterium:梭菌目细菌;metagenome:代表未分类细菌;Erysipelotrichaceae:丹毒丝菌科;Erysipelotrichaceae_uncssified:未分类的丹毒丝菌科;Acetatifactor:产醋菌属;Acetatifactor_unclassified:未分类的产醋菌属;Mucispirillum_unclassified:未分类的黏螺菌属;Mucispirillum_sp.:黏螺菌属;Deferribacterota:脱铁杆菌门;Deferribacteres:脱铁杆菌纲;Deferribacterales:脱铁杆菌目;Deferribacteraceae:脱铁杆菌科;Mucispirillum:黏螺菌属;Eubacterium_coprostanoligenes_group:产粪甾醇真杆菌群;Eubacterium_coprostanoligenes_group_unclassified:未分类的产粪甾醇真杆菌群;Ruminococcaceae_unclassified:未分类的瘤胃球菌科。

Fig.7 Analysis of species differences in intestinal microbiota of mice

2.3.5 包被PB58对小鼠肠道代谢物的影响

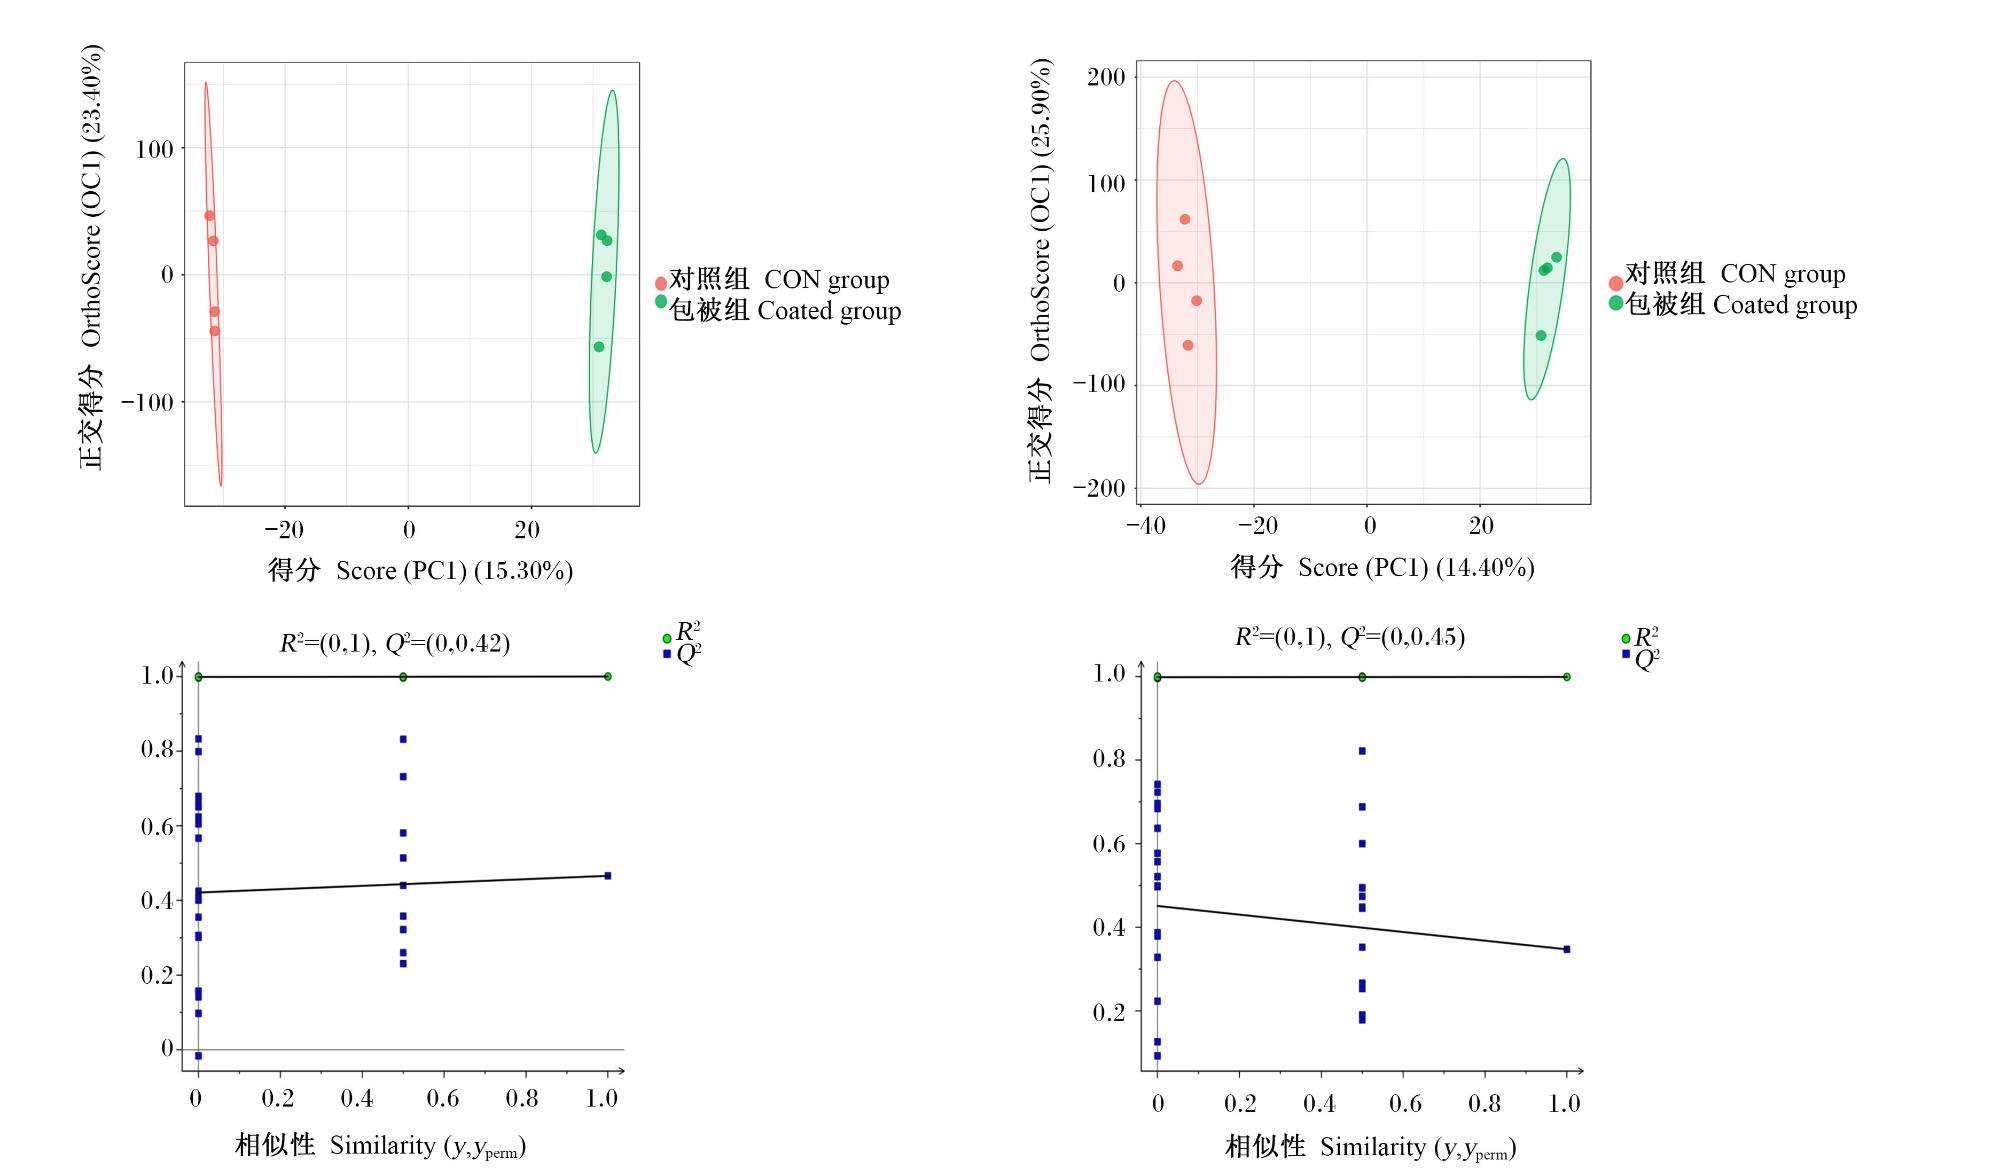
图8所示为正、负离子模式的正交偏最小二乘判别分析(OPLS-DA)图,对照组与包被组样本在95%置信区间内完全分离,表明包被PB58显著改变了小鼠肠道代谢物组成结构。置换检验结果显示,正、负离子模式下原始模型的拟合解释率均达到最优(R2=1),预测能力分别为Q2=0.42、Q2=0.45(均满足Q2>0.05),证明组间代谢差异真实存在,模型具有良好可靠性。
图8 OPLS-DA得分图和置换检验图(左:正离子模式;右:负离子模式)

Fig.8 OPLS-DA score plots and permutation test plots (left: positive ion mode; right: negative ion mode)

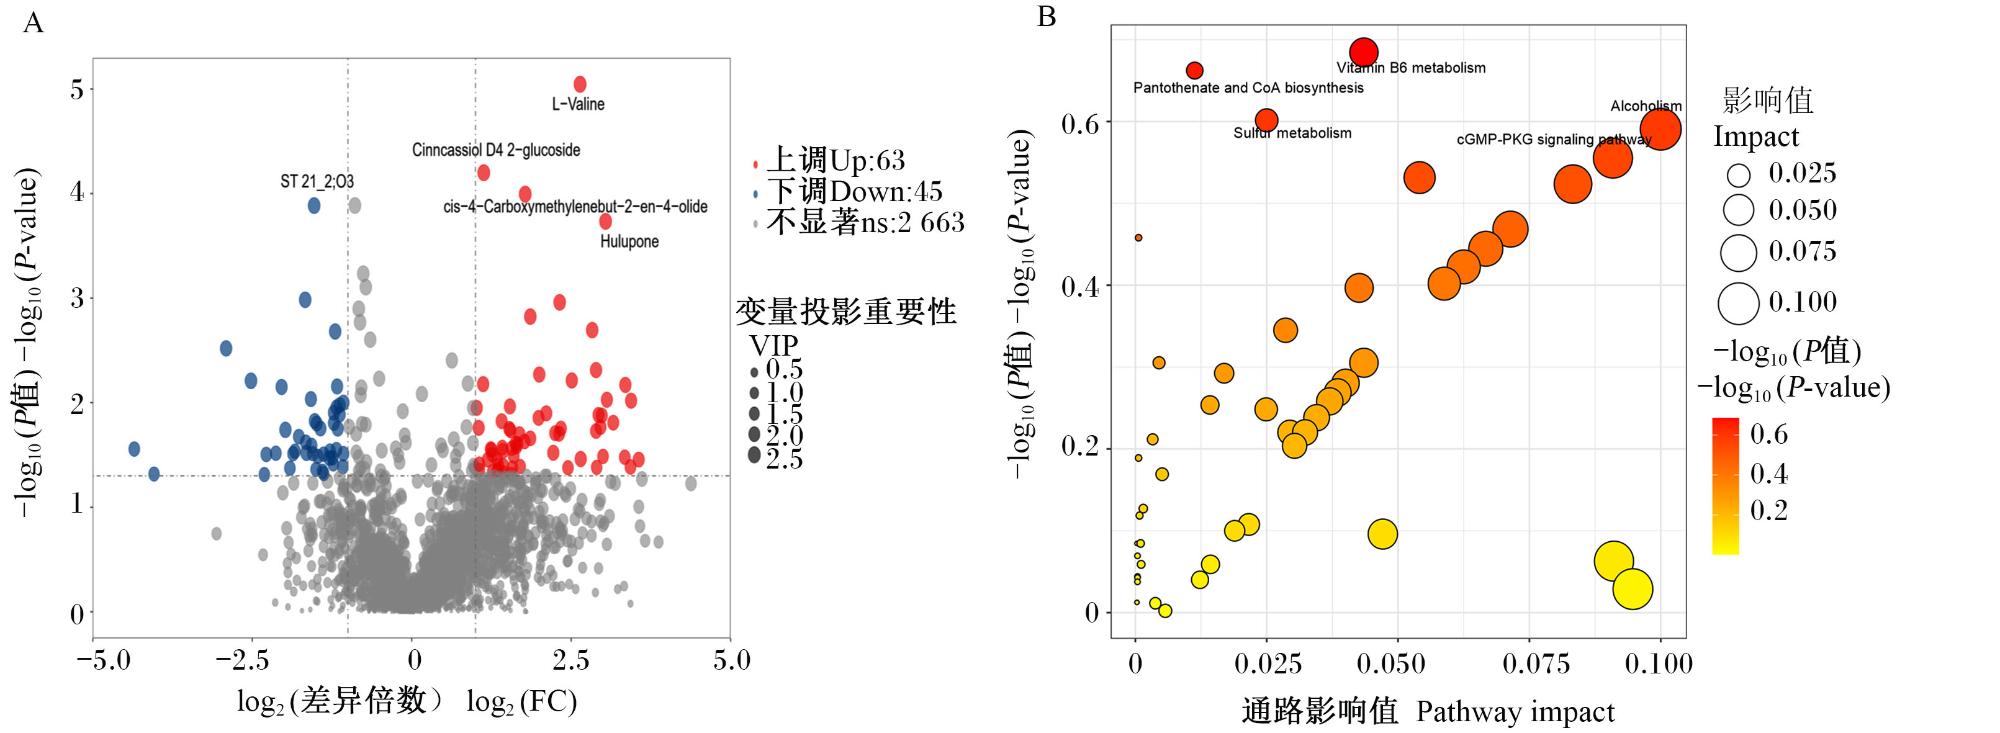
图9-A展示了对照组与包被组小鼠肠道差异代谢物火山图,在排名前5的差异代谢物中,上调的是L-缬氨酸、肉桂醇D4 2-葡萄糖苷、顺-4-羧基亚甲基-2-丁烯-4-醇、希鲁酮,下调的是17α,20α-二羟基孕酮。图9-B展示了对照组与包被组小鼠肠道差异代谢物富集的KEGG通路,排名前5的代谢通路为泛酸和辅酶A的生物合成、硫代谢、维生素B6代谢、cGMP-PKG信号通路和酒精中毒。
图9 包被PB58对小鼠肠道代谢物的影响

A:火山图(红色圆圈代表显著上调,蓝色圆圈代表显著下调) Volcano map (red circles represent significant upregulation, and blue circles represent significant downregulation);B:差异代谢物KEGG代谢通路图 KEGG metabolic pathway map of differential metabolites。

L-Valine:L-缬氨酸;Cinncassiol D4 2-glucoside:肉桂醇D4 2-葡萄糖苷;ST 21_2;O3:17α,20α-二羟基孕酮;cis-4-Carboxymethylene-but-2-en-4-olid:顺-4-羧基亚甲基-2-丁烯-4-醇;Hulupon:希鲁酮;Pantothenate and CoA biosynthesis:泛酸和辅酶A的生物合成;Sulfur metabolism:硫代谢;Vitamin B6 metabolism:维生素B6代谢;cGMP-PKG signaling pathway:cGMP-PKG信号通路;Alcoholism:酒精中毒。

Fig.9 Effects of coated PB58 on intestinal metabolites in mice

2.3.6 小鼠肠道差异菌群与差异代谢物的相关性分析

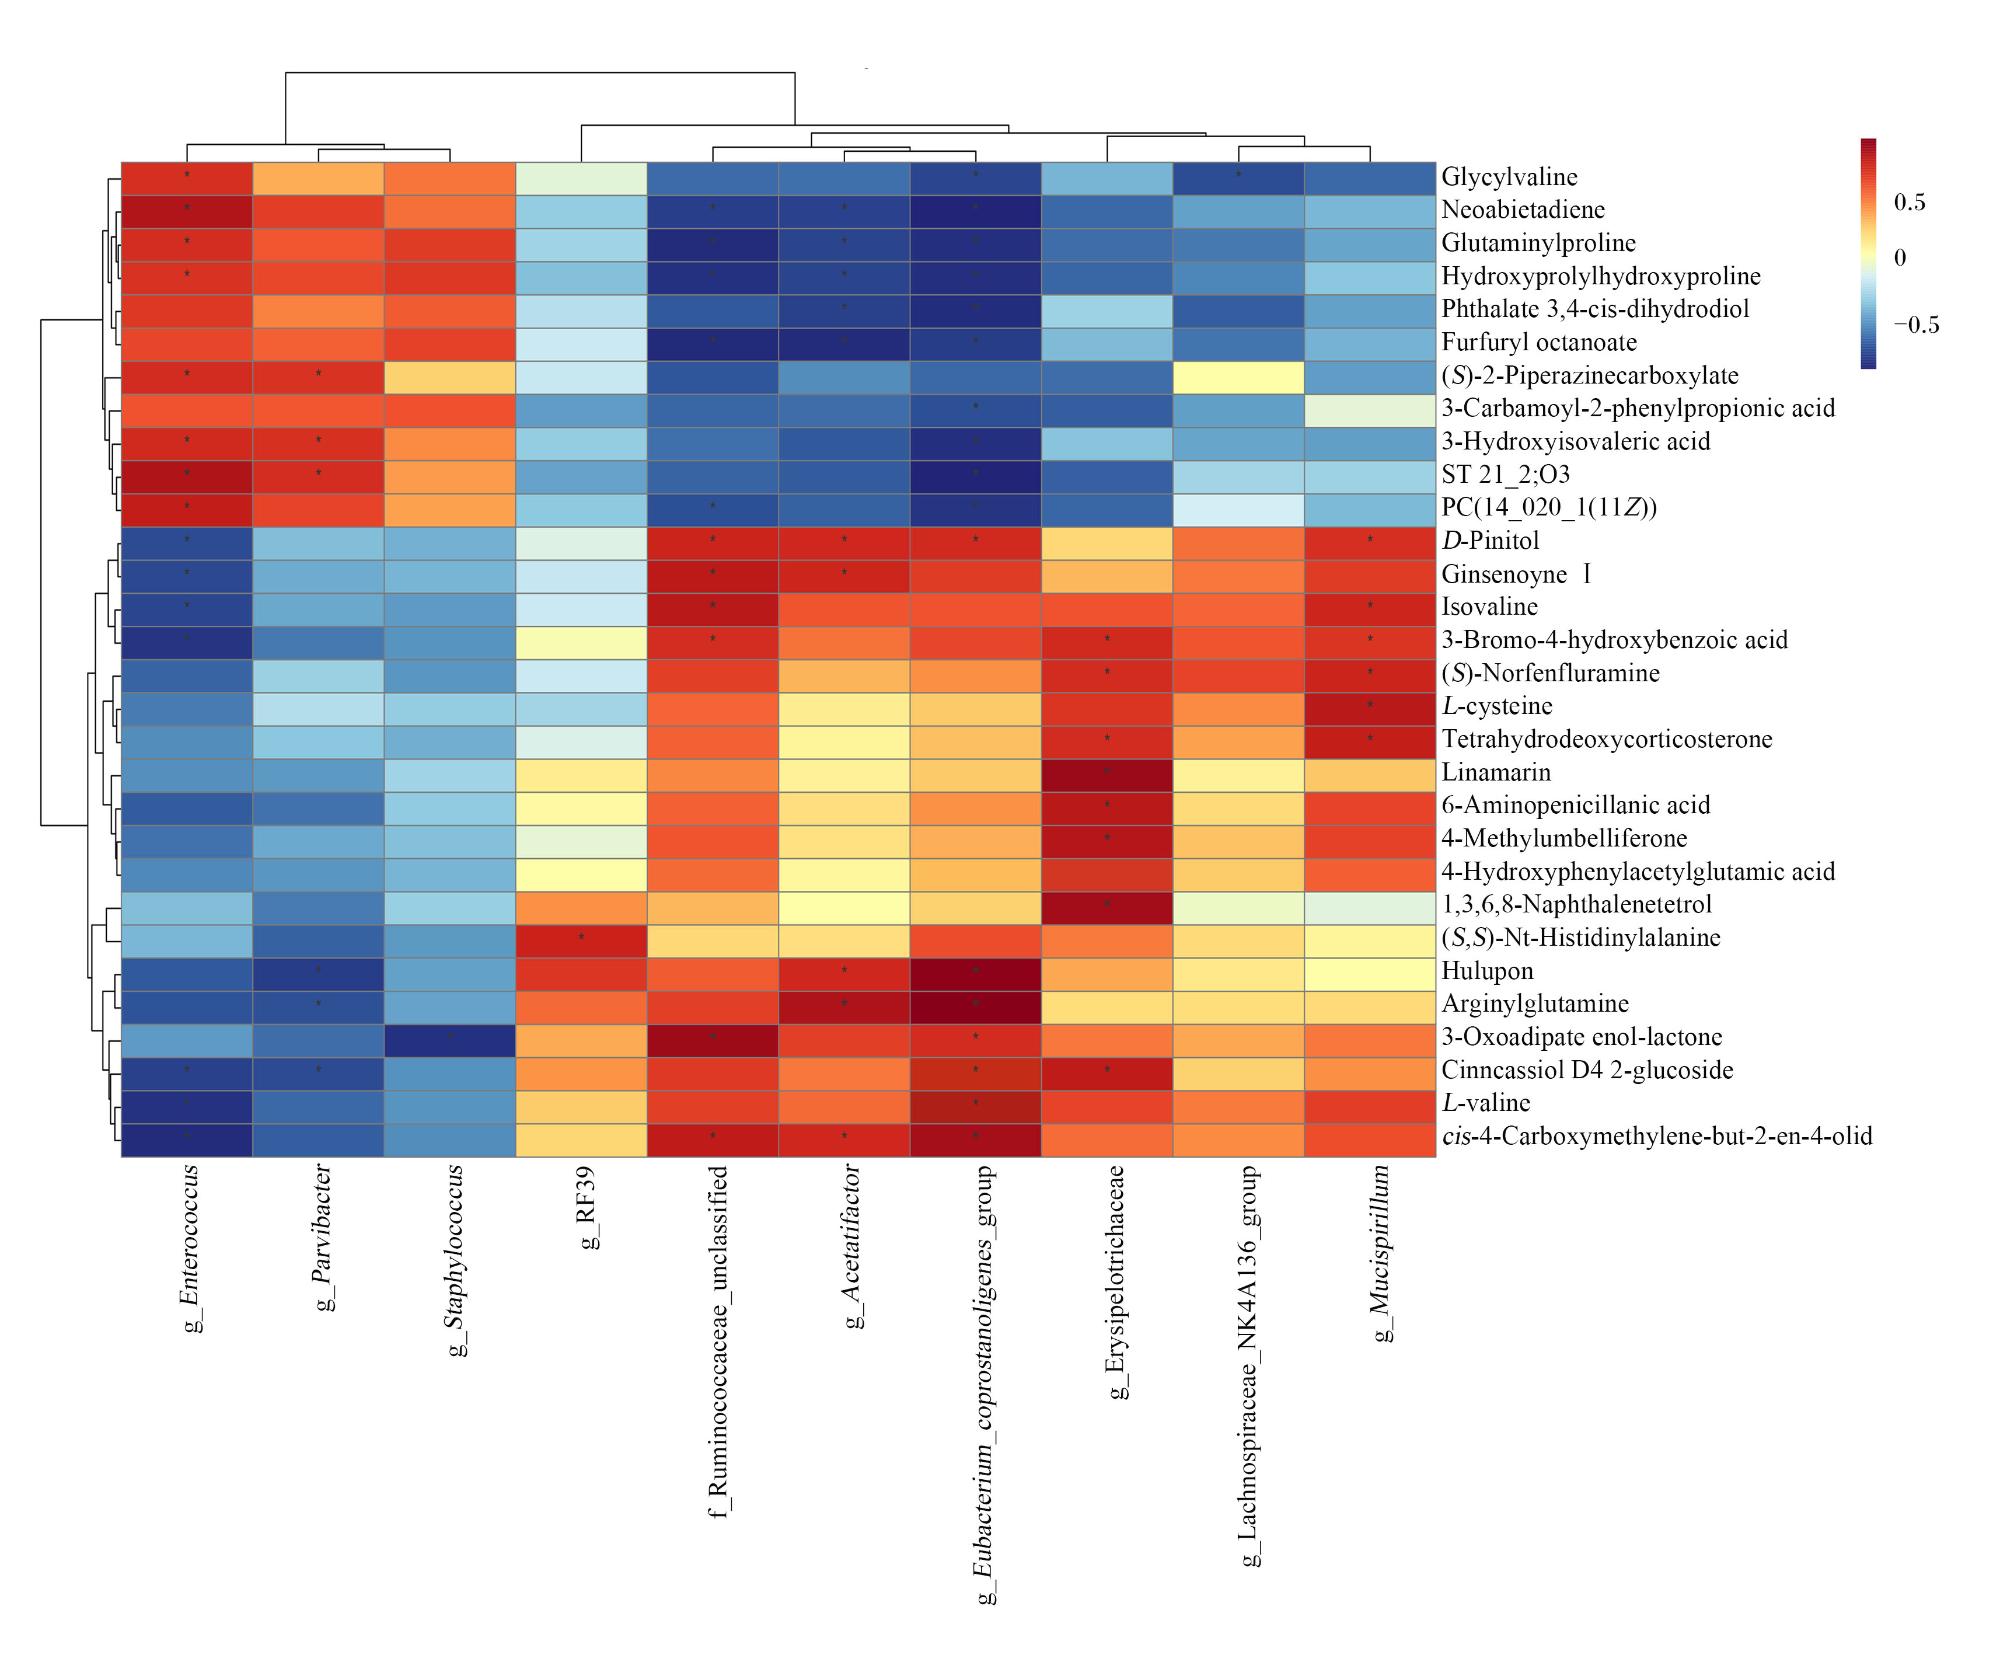
图10所示,包被组的差异微生物与差异代谢物存在显著相关性,明晰了微生物对代谢物的影响。其中,产醋菌属、未分类的瘤胃球菌科与D-松醇、人参炔醇Ⅰ等植物次生代谢物类呈显著正相关(P<0.05);产粪甾醇真杆菌群与精氨酰谷氨酰胺、L-缬氨酸这类氨基酸代谢物呈显著正相关(P<0.05);黏螺菌属与异缬氨酸、L-半胱氨酸这类氨基酸代谢物呈显著正相关(P<0.05)。
图10 小鼠肠道差异菌群与差异代谢物的相关性热图

“*”表示显著相关(P<0.05),红色表示正相关,蓝色表示负相关。“*” indicates a significant correlation (P<0.05), red represents a positive correlation, and blue represents a negative correlation.

Enterococcus:肠球菌属;Parvibacter:小杆菌属;Staphylococcus:葡萄球菌属;RF39:厚壁菌门RF39属;Ruminococcaceae_unclassified:未分类的瘤胃球菌科;Acetatifactor:产醋菌属;Eubacterium_coprostanoligenes_group:产粪甾醇真杆菌群;Erysipelotrichaceae:丹毒丝菌科;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Mucispirillum:黏螺菌属;Glycylvaline:甘氨酰缬氨酸;Neoabietadiene:新枞二烯;Glutaminylproline:谷氨酰胺酰脯氨酸;Hydroxyprolylhydroxyproline:羟基脯氨酰羟基脯氨酸;Phthalate 3,4-cis-dihydrodiol:邻苯二甲酸3,4-顺式-二氢二醇;Furfuryl octanoate:糠基辛酸酯;(S)-2-Piperazinecarboxylate:(S)-2-哌嗪羧酸盐;3-Carbamoyl-2-phenylpropionic acid:3-氨基甲酰基-2-苯基丙酸;3-Hydroxyisovaleric acid:3-羟基异戊酸;ST 21_2;O3:17α,20α-二羟基孕酮;PC(14_020_1(11Z)):磷脂酰胆碱(14∶0/18∶2 (11Z));D-Pinitol:D-松醇;Ginsenoyne Ⅰ:人参炔醇Ⅰ;Isovaline:异缬氨酸;3-Bromo-4-hydroxybenzoic acid:3-溴-4-羟基苯甲酸;(S)-Norfenfluramine:(S)-去甲氟苯丙胺;L-cysteine:L-半胱氨酸;Tetrahydrodeoxycorticosterone:四氢脱氧皮质酮;Linamarin:亚麻苦苷;6-Aminopenicillanic acid:6-氨基青霉烷酸;4-Methylumbelliferone:4-甲基伞形酮;4-Hydroxyphenylacetylglutamic acid:4-羟基苯乙酰谷氨酸;1,3,6,8-Naphthalenetetrol:1,3,6,8-萘四酚;(S,S)-Nt-Histidinylalanine:(S,S)-Nt-组氨酰丙氨酸;Hulupon:希鲁酮;Arginylglutamine:精氨酰谷氨酰胺;3-Oxoadipate enol-lactone:3-氧代己二酸烯醇内酯;Cinncassiol D4 2-glucoside:肉桂醇D4 2-葡萄糖苷;L-valine:L-缬氨酸;cis-4-Carboxymethylene-but-2-en-4-olid:顺-4-羧基亚甲基-2-丁烯-4-醇。

Fig.10 Correlation heatmap between intestinal differential microbiota and differential metabolites of mice

3 讨论

3.1 铁-单宁酸-阿魏酸包被系统对PB58环境耐受性的影响

益生菌易受到外界及动物胃肠道等不利环境胁迫,导致活性受损而影响益生效果,枯草芽孢杆菌虽借助独特的芽孢结构,可在高温、酸性等环境中维持较良好的活性,但口服进入胃肠道后,芽孢的保护作用仍不足以抵御消化液的持续侵蚀,部分菌株在抵达肠道前即失活,无法实现有效定植[10-12]。为解决这一关键问题,本研究选取枯草芽孢杆菌PB58并对其进行纳米包被处理,系统检测包被后PB58在不同环境下的耐受性,并进一步探究包被PB58对小鼠肠道的益生作用。
纳米金属-多酚包被系统操作步骤简单且对益生菌无毒性影响,是枯草芽孢杆菌理想的保护载体[13]。本研究采用Fe3+、单宁酸和阿魏酸作为包被材料,其中,游离形式的单宁酸可以作为体内天然存在的金属离子螯合剂,利于形成疏水性的金属离子-单宁酸络合物;Fe3+与配体具有强相互作用、高可连接性和低毒性,是配位单宁酸的首选金属离子,铁-单宁酸涂层已被证实可以提高益生菌的定植效率[14-15]。而阿魏酸具有良好的pH稳定性,可通过质子化作用与金属酚网络结合,进一步增强包被结构的致密性[16-17]。本试验在成功构建PB58的铁-单宁酸-阿魏酸包被系统后,在模拟体内消化条件下,该包被系统对PB58起到了有效的保护作用,为PB58在复杂胃肠道环境中的存活创造了有利条件。

3.2 包被PB58对小鼠健康及肠道形态的影响

枯草芽孢杆菌可通过在肠道内定植并代谢产生多种消化酶,促进饲粮中营养成分的分解与吸收,从而提高动物采食量和增重效果[18]。本试验中,灌胃包被PB58提高了小鼠的平均日增重和平均日采食量,但因试验周期较短(25 d),导致日增重累积效应不足,且初始体重存在微小个体差异,2组的终末体重未呈现显著差异,但这并不影响包被PB58提高小鼠生长速率的核心结论[19]。除小鼠生长指标的改变外,包被PB58对小鼠健康的影响也体现在脏器的发育上,肝脏作为动物重要的代谢器官,肝脏指数的改善代表包被PB58提高了肝脏的代谢功能,促进了营养物质的转化与利用。而小鼠结肠长度以及回肠绒毛长度的变化反映了肠道的健康状态,较长的结肠长度有助于增加肠道对营养、水分和电解质的吸收,同时也证明肠道菌群的代谢活动增强[20]。包被PB58在调节小鼠免疫层面上同样发挥积极作用,IL-10可以抑制炎性因子产生,减轻肠道炎症反应;IL-22主要参与肠道黏膜屏障的保护,提高肠道的防御功能[21]。灌胃包被PB58后,小鼠血清中抗炎因子IL-10和IL-22的含量升高,说明小鼠的抗炎能力提高。TNF-α和IL-6是介导多种感染性、自身免疫性及代谢性炎症的核心细胞因子[22],灌胃包被PB58有效降低了小鼠血清中炎性因子TNF-α的水平,但由于2组小鼠均无长期炎症表现,所以未在统计学意义上触发IL-6的降低机制,该结果与刘公言等[23]所得结果相类似。上述结果表明,包被PB58通过促进抗炎因子的分泌,抑制促炎因子的产生,调节机体的免疫平衡,减少肠道炎症,改善小鼠肠道健康。

3.3 包被PB58对小鼠肠道菌群及其代谢物的影响

肠道菌群作为肠道微生态的核心,其结构组成与平衡对肠道健康至关重要[24]。α多样性是评价肠道微生态平衡的关键指标,Lin等[25]发现,枯草芽孢杆菌可提高小鼠肠道菌群的Ace指数,增加了肠道微生物群的多样性,这一结论与本研究的α多样性分析结果一致,验证了包被PB58对小鼠肠道微生态平衡的改善作用,PCoA结果同样证明了包被PB58可以调节肠道菌群结构。菌群组成分析表明,包被枯草芽孢杆菌可通过调控小鼠肠道菌群结构,影响特定菌属的丰度[26]。本试验中,灌胃包被PB58后,小鼠肠道中厚壁菌门的相对丰度增加。厚壁菌门作为肠道碳水化合物代谢的核心功能菌群,其富集可能通过促进短链脂肪酸生成,为肠道上皮细胞提供能量,是肠道微生态健康的重要标志[27-28]。在属水平上,包被组小鼠肠道菌群中未分类的毛螺菌科的相对丰度较高,该菌科被证实可通过调节肠道菌群结构,减少有害菌定植,进而促进肠道健康[29]。经LEfSe分析得出,包被组小鼠肠道菌群中未分类的瘤胃球菌科和产粪甾醇真杆菌群的相对丰度明显升高。瘤胃球菌科相关细菌作为肠道有益共生菌,可促进肠道蠕动,缓解肠道应激并调节肠道微生态平衡[30]。产粪甾醇真杆菌群可通过增强肠道黏液屏障的完整性,促进黏蛋白分泌,进而改善肠道功能[31]。综上可知,包被PB58能够提高有益菌属的相对丰度,调节小鼠肠道菌群结构,从而改善肠道健康。
代谢组学分析结果显示,灌胃包被PB58后,小鼠肠道内L-缬氨酸含量显著升高,这可能与该菌株产生并积累L-缬氨酸的能力有关[32]L-缬氨酸的合成以丙酮酸为底物,经枯草芽孢杆菌关键酶(乙酰羟基酸合成酶、乙酰乳酸合成酶)催化生成2-乙酰乳酸,再经异构酶及脱水酶作用转化为2-酮异戊酸,最终通过转氨酶胺化完成合成[33-34]。作为动物的必需氨基酸,L-缬氨酸可由肠道微生物释放,进而影响宿主免疫状态、维持肠道屏障功能,并具有减轻炎症、防止肠道损伤及改善肠道代谢的作用[35]。肠道有益代谢物既为微生态稳态提供重要支撑,又能与有益菌群协同促进肠道健康,而相关性分析可直观展示微生物与代谢物的关联[36]。小鼠灌胃包被PB58后,差异菌群产粪甾醇真杆菌群的相对丰度提高,产粪甾醇真杆菌群具备产生短链脂肪酸、维持肠道代谢平衡的特性[37],而L-缬氨酸作为泛酸和辅酶A生物合成通路中的关键组分,其在该通路显著富集并呈上调趋势,并与产粪甾醇真杆菌群的相对丰度呈正相关,提示二者可能协同改善小鼠肠道健康。
L-缬氨酸是合成泛酸的重要物质,其通过分解代谢生成α-酮异戊酸,随后在生物酶的作用下合成泛解酸,泛解酸和β-丙氨酸在三磷酸腺苷的支持下,直接合成泛酸,泛酸合成量的增加将会促进辅酶A的合成[38-39]。辅酶A作为体内关键的酰基载体与代谢辅酶,参与糖、脂肪和蛋白质的代谢,为机体提供所需能量,此外,当泛酸与辅酶A充足时,肠道黏膜屏障完整性增强,减少病原体入侵且增加肠道通透性,进而对肠道产生积极作用[40-41]。综上可知,包被PB58通过促进肠道内产粪甾醇真杆菌群的富集,进而调节L-缬氨酸的含量,为小鼠肠道提供能量底物,激活泛酸和辅酶A生物合成途径,维持肠道内代谢稳态,最终实现对小鼠肠道健康及整体代谢功能的改善。

4 结论

铁-单宁酸-阿魏酸包被系统对猪源枯草芽孢杆菌PB58无毒性,并能有效提高其对胃肠道环境的耐受性。包被PB58可促进小鼠肠道中产粪甾醇真杆菌群等有益菌群的增殖,上调差异代谢物L-缬氨酸的含量,进而激活其所在的泛酸和辅酶生物合成通路。通过上述菌群与代谢物的协同作用,包被PB58能够改善小鼠肠道形态,优化肠道菌群结构与代谢物组成,进而促进小鼠整体健康。
[1]
LOW C X, TAN L T H, AB MUTALIB N S, et al. Unveiling the impact of antibiotics and alternative methods for animal husbandry:a review[J]. Antibiotics, 2021, 10(5):578.

DOI

[2]
FILIDOU E, KANDILOGIANNAKIS L, SHREWSBURY A, et al. Probiotics:shaping the gut immunological responses[J]. World Journal of Gastroenterology, 2024, 30(15):2096-2108.

DOI

[3]
SUDAN S, FLETCHER L, ZHAN X S, et al. Comparative efficacy of a novel Bacillus subtilis-based probiotic and pharmacological zinc oxide on growth performance and gut responses in nursery pigs[J]. Scientific Reports, 2023, 13(1):4659.

DOI

[4]
RIVERA-PÉREZ W, BARQUERO-CALVO E, CHAVES A J. Effect of the use of probiotic Bacillus subtilis (QST 713) as a growth promoter in broilers:an alternative to bacitracin methylene disalicylate[J]. Poultry Science, 2021, 100(9):101372.

DOI

[5]
WANG X Y, CAO Z P, ZHANG M M, et al. Bioinspired oral delivery of gut microbiota by self-coating with biofilms[J]. Science Advances, 2020, 6(26):eabb1952.

[6]
HU X X, LIU C Y, ZHANG H T, et al. In vitro digestion of sodium alginate/pectin co-encapsulated Lactobacillus bulgaricus and its application in yogurt bilayer beads[J]. International Journal of Biological Macromolecules, 2021, 193(Pt B):1050-1058.

DOI

[7]
ZHAI Z H, WANG X, QIAN Z Y, et al. Lactobacillus rhamnosus GG coating with nanocomposite ameliorates intestinal inflammation[J]. Biomedicine & Pharmacotherapy, 2024, 178:117197.

DOI

[8]
孙芸. 健康与腹泻仔猪大肠菌群结构特性及抗腹泻优势菌株分离鉴定[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2023.

SUN Y. Structural characteristics of colonic microflora in healthy and diarrheic piglets and isolation and identification of diarrhea-resistant dominant strains[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2023. (in Chinese)

[9]
XIE A Q, JI H H, LIU Z Y, et al. Modified prebiotic-based “shield” armed probiotics with enhanced resistance of gastrointestinal stresses and prolonged intestinal retention for synergistic alleviation of colitis[J]. ACS Nano, 2023, 17(15):14775-14791.

DOI

[10]
ZHOU J, LI M Y, CHEN Q F, et al. Programmable probiotics modulate inflammation and gut microbiota for inflammatory bowel disease treatment after effective oral delivery[J]. Nature Communications, 2022, 13(1):3432.

DOI PMID

[11]
WANG Y Y, HENG C, ZHOU X H, et al. Supplemental Bacillus subtilis DSM 29784 and enzymes,alone or in combination,as alternatives for antibiotics to improve growth performance,digestive enzyme activity,anti-oxidative status,immune response and the intestinal barrier of broiler chickens[J]. The British Journal of Nutrition, 2021, 125(5):494-507.

DOI

[12]
ADILAH R N, CHIU S T, HU S Y, et al. Improvement in the probiotic efficacy of Bacillus subtilis E20-stimulates growth and health status of white shrimp,Litopenaeus vannamei via encapsulation in alginate and coated with chitosan[J]. Fish & Shellfish Immunology, 2022, 125:74-83.

[13]
WASUWANICH P, FAN G, BURKE B, et al. Metal-phenolic networks as tuneable spore coat mimetics[J]. Journal of Materials Chemistry B, 2022, 10(37):7600-7606.

DOI PMID

[14]
ZHOU L L, CHEN J J, LI R H, et al. Metal-polyphenol-network coated Prussian blue nanoparticles for synergistic ferroptosis and apoptosis via triggered GPX4 inhibition and concurrent in situ bleomycin toxification[J]. Small, 2021, 17(47):2103919.

DOI

[15]
WINDEMUTH S, HAHN J, YOU J C, et al. Iron-tannin coating reduces clearance and increases tumor colonization of systemically delivered bacteria[J]. ACS Synthetic Biology, 2024, 13(12):3948-3960.

DOI PMID

[16]
LING X, ZHANG J J, TENG J W, et al. Effects of cross-linking of rice protein with ferulic acid on digestion and absorption of ferulic acid[J]. International Journal of Food Sciences and Nutrition, 2023, 74(3):313-326.

DOI

[17]
MARTINS G N, SPÍNOLA V, CASTILHO P C. Release of adsorbed ferulic acid in simulated gastrointestinal conditions[J]. European Food Research and Technology, 2020, 246(6):1297-1306.

DOI

[18]
SUN X H, MA L, XUAN Y Q, et al. Degradation of anti-nutritional factors in maize gluten feed by fermentation with Bacillus subtilis:a focused study on optimizing fermentation conditions[J]. Fermentation, 2024, 10(11):555.

DOI

[19]
YANG J, NING H C, ZHANG Q, et al. Effects of Bacillus subtilis BS-Z15 on intestinal microbiota structure and body weight gain in mice[J]. Probiotics and Antimicrobial Proteins, 2023, 15(3):706-715.

DOI

[20]
胡静怡, 朱磊, 连紫宇, 等. 白头翁汤对溃疡性结肠炎模型小鼠肠道菌群及短链脂肪酸的影响[J]. 南京中医药大学学报, 2021, 37(6):817-822.

HU J Y, ZHU L, LIAN Z Y, et al. Baitouweng decoction alleviates DSS-induced colitis via rebalancing gut microbiota and regulating short chain fatty acids[J]. Journal of Nanjing University of Traditional Chinese Medicine, 2021, 37(6):817-822. (in Chinese)

[21]
WEI H X, WANG B L, LI B F. IL-10 and IL-22 in mucosal immunity:driving protection and pathology[J]. Frontiers in Immunology, 2020, 11:1315.

DOI

[22]
TANAKA T, NARAZAKI M, MASUDA K, et al. Regulation of IL-6 in immunity and diseases[J]. Advances in Experimental Medicine and Biology, 2016, 941:79-88.

PMID

[23]
刘公言, 高淑霞, 白莉雅, 等. 饲粮中添加不同益生菌对肉兔生长性能、屠宰性能、回肠黏膜免疫指标和盲肠发酵指标的影响[J]. 动物营养学报, 2023, 35(1):527-535.

DOI

LIU G Y, GAO S X, BAI L Y, et al. Effects of dietary adding different probiotics on growth performance,slaughter performance,ileum mucosal immune indexes and cecal fermentation indexes of meat rabbits[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):527-535. (in Chinese)

[24]
BEAUMONT M, PAËS C, MUSSARD E, et al. Gut microbiota derived metabolites contribute to intestinal barrier maturation at the suckling-to-weaning transition[J]. Gut Microbes, 2020, 11(5):1268-1286.

DOI PMID

[25]
LIN D T, SONG Q Y, ZHANG Y S, et al. Bacillus subtilis attenuates hepatic and intestinal injuries and modulates gut microbiota and gene expression profiles in mice infected with Schistosoma japonicum[J]. Frontiers in Cell and Developmental Biology, 2021, 9:766205.

DOI

[26]
SU Y, LIU C, FANG H, et al. Bacillus subtilis:a universal cell factory for industry,agriculture,biomaterials and medicine[J]. Microbial Cell Factories, 2020, 19(1):173.

DOI

[27]
ZHANG S, ZHONG G, SHAO D, et al. Dietary supplementation with Bacillus subtilis promotes growth performance of broilers by altering the dominant microbial community[J]. Poultry Science, 2021, 100(3):100935.

DOI

[28]
KHAN A, LI S Q, HAN H W, et al. A gluten degrading probiotic Bacillus subtilis LZU-GM relieve adverse effect of gluten additive food and balances gut microbiota in mice[J]. Food Research International, 2023, 170:112960.

DOI

[29]
CHEN Z J, WANG H, TAN L L, et al. Protective effects of four structurally distinct sanshools ameliorate dextran sodium sulfate-induced ulcerative colitis by restoring intestinal barrier function and modulating the gut microbiota[J]. Antioxidants, 2024, 13(2):153.

DOI

[30]
LI R, XU S, LI B, et al. Gut indigenous Ruminococcus gnavus alleviates constipation and stress-related behaviors in mice with loperamide-induced constipation[J]. Food & Function, 2023, 14(12):5702-5715.

[31]
BAI D, ZHAO J, WANG R, et al. Eubacterium coprostanoligenes alleviates chemotherapy-induced intestinal mucositis by enhancing intestinal mucus barrier[J]. Acta Pharmaceutica Sinica B, 2024, 14(4):1677-1692.

DOI

[32]
CHATTOPADHYAY S P, BANERJEE A K. Production of valine by a Bacillus sp.[J]. Zeitschrift für Allgemeine Mikrobiologie, 1978, 18(4):243-254.

[33]
CHIPMAN D, BARAK Z, SCHLOSS J V. Biosynthesis of 2-aceto-2-hydroxy acids:acetolactate synthases and acetohydroxyacid synthases[J]. Biochimica et Biophysica Acta, 1998, 1385(2):401-419.

[34]
WESTBROOK A W, REN X, MOO-YOUNG M, et al. Metabolic engineering of Bacillus subtilis for l-valine overproduction[J]. Biotechnology and Bioengineering, 2018, 115(11):2778-2792.

DOI

[35]
CHEN Y F, SUN K Y, QI Y, et al. L-valine derived from the gut microbiota protects sepsis-induced intestinal injury and negatively correlates with the severity of sepsis[J]. Frontiers in Immunology, 2024, 15:1424332.

DOI

[36]
WANG H Y, XU R Y, ZHANG H, et al. Swine gut microbiota and its interaction with host nutrient metabolism[J]. Animal Nutrition, 2020, 6(4):410-420.

DOI PMID

[37]
MUKHERJEE A, LORDAN C, ROSS R P, et al. Gut microbes from the phylogenetically diverse genus Eubacterium and their various contributions to gut health[J]. Gut Microbes, 2020, 12(1):1802866.

DOI

[38]
LEONARDI R, JACKOWSKI S. Biosynthesis of pantothenic acid and coenzyme A[J]. EcoSal Plus, 2007, 2(2):10.

[39]
MARTINEZ D L, TSUCHIYA Y, GOUT I. Coenzyme A biosynthetic machinery in mammalian cells[J]. Biochemical Society Transactions, 2014, 42(4):1112-1117.

DOI PMID

[40]
SABUI S, KAPADIA R, GHOSAL A, et al. Biotin and pantothenic acid oversupplementation to conditional SLC5A6 KO mice prevents the development of intestinal mucosal abnormalities and growth defects[J]. American Journal of Physiology:Cell Physiology, 2018, 315(1):C73-C79.

[41]
CZUMAJ A, SZROK-JURGA S, HEBANOWSKA A, et al. The pathophysiological role of CoA[J]. International Journal of Molecular Sciences, 2020, 21(23):9057.

DOI

Outlines

/