RESEARCH PAPER

Effects of Brevibacillus laterosporus on Growth Performance, Serum Indexes and Intestinal Health of Growing Pigs

  • YU Jing , 1, 2 ,
  • LIU Yucheng 2 ,
  • HUANG Junjie 1, 2 ,
  • SONG Min 2 ,
  • MA Xianyong 2 ,
  • DENG Jinping , 1, ** ,
  • DENG Dun , 2, **
Expand
  • 1 College of Animal Science, South China Agricultural University, Guangzhou 510640, China
  • 2 Guangdong Provincial Engineering Technology Research Center for Quality Control and Evaluation of Livestock and Poultry Meat Products, Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
** DENG Jinping, professor, E-mail: ;
DENG Dun, associate professor, E-mail:

*Contributed equally

Received date: 2025-11-12

  Online published: 2026-06-13

Abstract

This experiment was conducted to investigate the effects of Brevibacillus laterosporus on growth performance, serum indexes and intestinal health of growing pigs. Fifty four 7-week-old “Duroc×Landrace×Large White” three hybrid growing pigs were selected and randomly divided into 3 groups with 6 replicates per group and 3 pigs per replicate. The control group (CON group) was fed a basal diet, the viable bacteria group (BL group) fed the basal diet supplemented with Brevibacillus laterosporus viable bacteria (5×10¹⁰ CFU/kg), and the heat-inactivated bacteria group (HBL group) was fed the basal diet supplemented with Brevibacillus laterosporus heat-inactivated bacteria (5×10¹⁰ CFU/kg). The pre-experimental period lasted for 7 days, and the experimental period lasted for 40 days. The results showed as follows: 1) compared with the CON group, the average daily gain and final body weight of the BL group were significantly decreased (P<0.05). 2) Compared with the CON group, the contents of total cholesterol (T-CHO), low density lipoprotein cholesterol (LDL-C) and malondialdehyde (MDA) in serum of BL group and HBL group were significantly decreased (P<0.05), the serum catalase (CAT) activity of the BL group was significantly increased (P<0.05), and the serum total antioxidant capacity (T-AOC) of the HBL group was significantly increased (P<0.05). 3) Compared with the CON group, the mRNA relative expression levels of mucin 2 (MUC2) and Occludin in colon mucosa of the BL group were significantly increased (P<0.05), and the mRNA relative expression levels of mucin 1 (MUC1) and MUC2 in colon mucosa of the HBL group were significantly increased (P<0.05). 4) Compared with the CON group, the contents of acetate and isovalerate in colon of BL group and HBL group were significantly decreased (P<0.05), and the colon isobutyrate content of HBL group was significantly decreased (P<0.05). 5) Compared with the CON group, the colon Lactobacillus relative abundance of BL group and HBL group was significantly increased (P<0.05), the colon Streptococcus relative abundance of BL group and HBL group was significantly decreased (P<0.05), and the colon Terrisporobacter relative abundance of HBL group was significantly decreased (P<0.05). In conclusion, dietary Brevibacillus laterosporus viable bacteria and heat-inactivated bacteria can enhance intestinal barrier of growing pigs, optimize the structure of intestinal microbiota, thereby improve the intestinal health. Under the conditions of this experiment, the Brevibacillus laterosporus heat-inactivated bacteria shows comprehensive benefits with more application prospects than live bacteria.

Cite this article

YU Jing , LIU Yucheng , HUANG Junjie , SONG Min , MA Xianyong , DENG Jinping , DENG Dun . Effects of Brevibacillus laterosporus on Growth Performance, Serum Indexes and Intestinal Health of Growing Pigs[J]. Chinese Journal of Animal Nutrition, 2026 , 38(6) : 4123 -4136 . DOI: 10.12418/CJAN2026.331

侧孢短芽孢杆菌(Brevibacillus laterosporus)属于厚壁菌门,芽孢杆菌纲,芽孢杆菌目,类芽孢杆菌科,短芽孢杆菌属[1]。侧孢短芽孢杆菌在自然界中分布广泛,在土壤、火山泥流、堆肥、海水、昆虫体内、植物、食品和动物皮毛中都有发现[2],其主要功能体现在抑制病原菌生长、防治虫害、降解磷、改善土壤品质等作用[3]。侧孢短芽孢杆菌对各类细菌和真菌都表现出广谱的抑菌活性,对多种致病菌(如金黄色葡萄球菌、大肠杆菌、单增李斯特氏菌等)及部分真菌产生抑菌作用,且抑菌效果随接种比例增加而增强,其抑菌作用主要包括营养竞争及产生的抗菌肽的拮抗作用[4]。此外,侧孢短芽孢杆菌还表现出对高温和抗生素的耐受性,在85 ℃时存活率仍达96%以上,并对头孢他啶、庆大霉素、新霉素等抗生素不敏感,具有一定耐受性[5],且具有固氮、降解磷、产生纤维素酶和蛋白酶、铁载体等能力,在生物防治方面具有良好的应用前景[6]
侧孢短芽孢杆菌对动物健康具有显著调控作用,是《饲料添加剂品种目录(2013)》中允许添加的微生物种类,但是作为一种绿色、安全的饲料添加剂,目前关于侧孢短芽孢杆菌在猪饲粮中的应用研究较少。侧孢短芽孢杆菌具有提高动物生长性能、改善肠道健康及增强免疫功能等作用。在饮水中添加侧孢短芽孢杆菌能够提高清远麻鸡的终末体重和平均日增重(ADG),并降低料重比(F/G);提高血清总抗氧化能力(T-AOC)和超氧化物歧化酶(SOD)活性;降低肠道有害菌的相对丰度[7]。在饲粮中添加侧孢短芽孢杆菌能够提高肉鸡的肌肉系水力,改善肉品质[8]
然而,现有的研究主要应用于鸡和小鼠模型上,而针对猪(尤其是不同生长阶段)的系统性研究仍显不足。前期研究表明,从动物肠道分离的侧孢短芽孢杆菌,不仅在小鼠模型中表现出良好的安全性及肠道改善功能,还显示出调节脂质代谢的潜力[9-10]。进一步在育肥猪上的研究证实,侧孢短芽孢杆菌可改善肉品质,且其热灭活形式在维持益生效果的同时避免了活菌对生长性能的抑制作用[11]。这些研究提示,侧孢短芽孢杆菌的作用可能具有阶段特异性和形式依赖性。因此,本研究拟在猪生长阶段展开系统评估,探究饲粮中添加侧孢短芽孢杆菌活菌和热灭活菌对生长猪生长性能、血清生化和抗氧化指标及肠道健康的影响,旨在明确侧孢短芽孢杆菌的适用性,为其在生猪生产中的精准营养干预提供理论与应用依据。

1 材料与方法

1.1 试验材料

试验所用侧孢短芽孢杆菌由本课题组从健康的蚯蚓肠道中分离得到,在LB培养基中37 ℃、180 r/min有氧培养至对数期后,均分为2份。一份经4 ℃、6 000×g离心10 min获得纯化活菌;另一份经热灭活(100 ℃、30 min)后4 ℃、6 000×g离心10 min获得纯化热灭活菌,分别冻干处理制成益生菌制剂,其中活菌制剂活菌数≥1.0×10¹⁰ CFU/g。

1.2 试验设计与饲养管理

本动物试验由广东省农业科学院动物科学研究所实验动物伦理委员会审批,伦理批准编号:2024032。选取54头7周龄“杜×长×大”三元杂交阉公猪,随机分为3个组,每组6个重复,每个重复3头猪。对照组(CON组)饲喂基础饲粮,活菌组(BL组)饲喂添加5×10¹⁰ CFU/kg侧孢短芽孢杆菌活菌的基础饲粮,热灭活菌组(HBL组)饲喂添加5×1010 CFU/kg侧孢短芽孢杆菌热灭活菌的基础饲粮。预试期7 d,正试期40 d。基础饲粮组成及营养水平见表1。试验在广东省农业科学院动物科学研究所试验基地进行。试验期间猪只自由饮水,每天饲喂2次(09:00和15:00),每天定时清理圈舍,确保饲养管理条件一致。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 63.50
豆粕 Soybean meal (46% CP) 26.00
麦麸 Wheat bran 5.00
大豆油 Soybean oil 2.00
L-赖氨酸 L-Lys 0.23
DL-蛋氨酸 DL-Met (99.0%) 0.03
L-苏氨酸 L-Thr (98.5%) 0.04
磷酸氢钙 CaHPO4 1.00
石粉 Limestone 0.90
食盐 NaCl 0.30
预混料 Premix1) 1.00
合计 Total 100.00
营养水平 Nutrient levels2)
消化能 ME/(MJ/kg) 14.21
钙 Ca 0.66
有效磷 AP 0.31
赖氨酸 Lys 1.14
蛋氨酸 Met 0.33
苏氨酸 Thr 0.73
色氨酸 Trp 0.22
干物质 DM 86.39
粗蛋白质 CP 17.69
粗脂肪 EE 2.28
粗灰分 Ash 8.28

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 8 000 IU,VB1 4 mg,VB2 3.6 mg,VB5 40 mg,VB6 4 mg,VB12 0.02 mg,VD3 3 000 IU,VE 20 IU,VK3 2 mg,生物素 biotin 0.15 mg,叶酸 folic acid 1.0 mg,D-泛酸 D-pantothenic acid 11 mg,烟酸 nicotinic acid 10 mg,抗氧化剂 antioxidant 100 mg,Cu (as copper sulfate) 10 mg,Fe (as ferrous sulfate) 80 mg,Mn (as manganese sulfate) 80 mg,Zn (as zinc sulfate) 75 mg,I (as potassium iodide) 0.40 mg,Se (as sodium selenite) 0.30 mg。
2)干物质、粗蛋白质、粗脂肪和粗灰分为实测值,参照AOAC(2007)的方法;其他营养水平为计算值,参照《中国饲料成分及营养价值表(2020年第31版)》。DM, CP, EE and Ash were measured values, according to the method of AOAC (2007); the other nutrient levels were calculated values, which according to the Tables of Feed Composition and Nutritive Values in China (31st edition, 2020).

1.3 样品采集

使用电击方式将猪只致昏后进行静脉采血,分离血清后于-80 ℃冰箱保存待测。猪只采血后屠宰并进行采集样品,采集3份结肠内容物于2 mL冻存管中;取中段结肠组织,经生理盐水冲洗并用滤纸吸干后刮取黏膜,分装于2 mL冻存管中,液氮速冻后移至-80 ℃冰箱待测。

1.4 指标测定

1.4.1 生长性能

分别在试验开始和结束前1天对试验猪禁食12 h后空腹称重,试验期间每天对采食量进行记录,计算各组的ADG、平均日采食量(ADFI)和F/G,计算公式如下:
ADG(kg/d)=(终末体重-初始体重)/试验天数;
ADFI(kg/d)=每头猪的总采食量/试验天数;
F/G=ADFI/ADG。

1.4.2 血清生化指标

采用全自动生化分析仪(Selectra Pro XL,Vital Scientific,荷兰)测定血清总蛋白(TP)、白蛋白(ALB)、肌酐(CRE)、尿素(UREA)含量及谷丙转氨酶(ALT)、谷草转氨酶(AST)、碱性磷酸酶(ALP)活性,所用试剂购于中生北控生物科技股份有限公司。采用南京建成生物工程研究所的试剂盒测定血清葡萄糖(GLU)、甘油三酯(TG)、总胆固醇(T-CHO)、低密度脂蛋白胆固醇(LDL-C)、高密度脂蛋白胆固醇(HDL-C)含量。

1.4.3 血清抗氧化指标

血清谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)、SOD活性和丙二醛(MDA)含量及T-AOC均采用南京建成生物工程研究所的试剂盒进行测定。

1.4.4 肠道形态结构

将结肠组织置于4%多聚甲醛中室温过夜固定保存,随后进行石蜡包埋,并制成5 μm的苏木精-伊红(HE)染色切片。将染色后的组织切片放入显微镜(Axio Scope A1,Zeiss,德国)下进行观察,通过Image J软件测量黏膜厚度。

1.4.5 结肠黏膜紧密连接蛋白、黏蛋白和促炎因子基因表达

参考Liu等[12]的方法,利用Trizol试剂(合肥白鲨生物科技有限公司)提取样品总RNA,使用分光光度计(Nanodrop-1000,Thermo Fisher Scientific,美国)进行浓度与纯度测定,采用反转录试剂盒(EZBioscience,美国)将RNA反转录为cDNA并进行荧光定量PCR检测。使用Primer 6.0软件设计目的基因的引物序列,并由上海生工生物工程股份有限公司合成,目的基因和引物序列见表2。内参基因为β-肌动蛋白(β-actin),采用2-△△Ct法计算目的基因闭锁小带蛋白-1(ZO-1)、闭锁小带蛋白-2(ZO-2)、黏蛋白2(MUC2)、闭锁蛋白-2(Claudin-2)、黏蛋白1(MUC1)、闭合蛋白(Occludin)、肿瘤坏死因子-α(TNF-α)、Toll样受体-2(TLR-2)、Toll样受体-4(TLR-4)、白细胞介素-1β(IL-1β)、白细胞介素-10(IL-10)、白细胞介素-17(IL-17)、白细胞介素-22(IL-22)的mRNA相对表达量。
表2 目的基因和引物序列

Table 2 Target genes and primer sequences

基因 Genes 引物序列 Primer sequences (5'—3')
β-肌动蛋白
β-actin
F:AGAGCGCAAGTACTCCGTGT
R:ACATCTGCTGGAAGGTGGAC
闭锁小带蛋白-1
ZO-1
F:GAGGATGGTCACACCGTGGT
R:GGAGGATGCTGTTGTCTCGG
闭锁小带蛋白-2
ZO-2
F:GCAGAGACAACCCCCACTTT
R:CGTTAACCATGACCACCCGA
黏蛋白2
MUC2
F:CTGCTCCGGGTCCTGTGGGA
R:CCCGCTGGCTGGTGCGATAC
闭锁蛋白-2
Claudin-2
F:GCATCATTTCCTCCCTGTT
R:TCTTGGCTTTGGGTGGTT
黏蛋白1
MUC1
F:GGTACCCGGCTGGGGCATTG
R:GGTAGGCATCCCGGGTCGGA
闭合蛋白
Occludin
F:ATGCTTTCTCAGCCAGCGTA
R:AAGGTTCCATAGCCTCGGTC
肿瘤坏死因子-α
TNF-α
F:CCACGCTCTTCTGCCTACTGC
R:GCTGTCCCTCGGCTTTGAC
Toll样受体-2
TLR-2
F:TCACTTGTCTAACTTATCATCCTCTTG
R:TCAGCGAAGGTGTCATTATTGC
Toll样受体-4
TLR-4
F:TCAGTTCTCACCTTCCTCCTG
R:GTTCATTCCTCACCCAGTCTTC
白细胞介素-1β
IL-1β
F:CTCCAGCCAGTCTTCATTGTTC
R:TGCCTGATGCTCTTGTTCCA
白细胞介素-10
IL-10
F:GTCCGACTCAACGAAGAAGG
R:GCCAGGAAGATCAGGCAATA
白细胞介素-17
IL-17
F:CTCTCGTGAAGGCGGGAATC
R:GTAATCTGAGGGCCGTCTGG
白细胞介素-22
IL-22
F:CTACATCACCAACCGCACCT
R:TCAGAGTTGGGGAACAGCAC

1.4.6 结肠短链脂肪酸(SCFAs)含量

准确称取0.5 g结肠内容物于2 mL离心管中,记录样品重量,与超纯水按质量体积比(m/V)1∶3混合,涡旋振荡1 min后,5 000×g离心30 min。取1 mL上清至2 mL的离心管中,加入200 μL 42 mmol/L巴豆酸溶液和200 μL 10%偏磷酸溶液,振荡30 s。离心管放入冰箱4 ℃浸取过夜后取出,4 ℃下10 000×g离心10 min,取上清,与乙醚按体积比(V/V)1∶1混合萃取样品,置冰上静置5 min,取乙醚层。用1 mL的注射器吸取乙醚层,再用0.22 μm有机膜过滤,最后注入棕色进样瓶,利用气相色谱仪(7890B,Agilent,美国)进行结肠SCFAs含量测定。

1.4.7 结肠微生物群落

取结肠内容物2 mL,于-80 ℃冻存,将样品送至上海美吉生物医药科技有限公司进行16S rRNA基因测序,通过操作分类单元(OTU)数量进行α多样性(ACE、Chao、Shannon和Simpson指数)和β多样性分析[主坐标分析(PCoA)],并在门和属水平上比较结肠微生物组成。

1.5 数据统计分析

采用Excel 2021软件对试验数据进行分类和整理,数据采用SPSS 23.0软件进行单因素方差分析(one-way ANOVA),当P<0.05时使用Tukey’s法进行多重比较检验,利用Graphpad Prism 9.5软件作图。数据用平均值和均值标准误(SEM)表示,P<0.05为差异显著。

2 结果与分析

2.1 侧孢短芽孢杆菌对生长猪生长性能的影响

表3所示,与CON组相比,BL组的ADG和终末体重显著降低(P<0.05)。各组之间生长猪的ADFI和F/G均无显著差异(P>0.05)。
表3 侧孢短芽孢杆菌对生长猪生长性能的影响

Table 3 Effects of Brevibacillus laterosporus on growth performance of growing pigs

项目
Items
组别 Groups SEM P
P-value
CON BL HBL
初始体重 IBW/kg 17.63 17.70 17.87 0.120 0.752
终末体重 FBW/kg 42.40a 38.67b 41.73ab 0.636 0.034
平均日增重 ADG/(kg/d) 0.77a 0.66b 0.75ab 0.019 0.025
平均日采食量 ADFI/(kg/d) 1.55 1.37 1.52 0.033 0.065
料重比 F/G 2.01 2.11 2.04 0.038 0.524

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 侧孢短芽孢杆菌对生长猪血清生化和抗氧化指标的影响

表4所示,与CON组相比,BL组和HBL组的血清T-CHO和LDL-C含量显著降低(P<0.05),BL组的血清HDL-C含量显著升高(P<0.05)。各组之间生长猪血清TP、ALB、CRE、UREA、GLU、TG含量及ALT、AST、ALP活性均无显著差异(P>0.05)。
表4 侧孢短芽孢杆菌对生长猪血清生化指标的影响

Table 4 Effects of Brevibacillus laterosporus on serum biochemical indexes of growing pigs

项目
Items
组别 Groups SEM P
P-value
CON BL HBL
总蛋白 TP/(g/L) 64.35 63.04 63.48 1.208 0.919
白蛋白 ALB/(g/L) 22.13 20.90 21.64 0.595 0.735
肌酐 CRE/(μmol/L) 127.35 132.41 131.28 2.589 0.742
尿素 UREA/(mmol/L) 6.87 6.76 6.97 0.314 0.969
谷丙转氨酶 ALT/(U/L) 41.51 45.86 39.86 1.746 0.391
谷草转氨酶 AST/(U/L) 59.61 56.40 51.93 1.739 0.618
碱性磷酸酶 ALP/(U/L) 149.18 144.54 154.62 2.975 0.736
葡萄糖 GLU/(mmol/L) 5.11 5.38 4.73 4.847 0.159
甘油三酯 TG/(mmol/L) 0.79 0.78 0.74 0.135 0.937
总胆固醇 T-CHO/(mmol/L) 2.53a 2.17b 2.07b 0.059 0.007
高密度脂蛋白胆固醇 HDL-C/(mmol/L) 0.78b 0.85a 0.77b 0.072 0.017
低密度脂蛋白胆固醇 LDL-C/(mmol/L) 1.11a 0.86b 0.80b 0.013 0.005
表5所示,与CON组相比,BL组和HBL组的血清MDA含量显著降低(P<0.05),BL组的血清CAT活性显著提高(P<0.05),HBL组的血清T-AOC显著提高(P<0.05)。各组之间生长猪血清SOD、GSH-Px活性均无显著差异(P>0.05)。以上结果表明,饲粮中添加侧孢短芽孢杆菌活菌或热灭活菌均能够提高生长猪的抗氧化能力。
表5 侧孢短芽孢杆菌对生长猪血清抗氧化指标的影响

Table 5 Effects of Brevibacillus laterosporus on serum antioxidant indexes of growing pigs

项目
Items
组别 Groups SEM P
P-value
CON BL HBL
总抗氧化能力 T-AOC/(mmol/L) 0.17b 0.20ab 0.21a 0.006 0.005
过氧化氢酶 CAT/(U/mL) 2.04b 6.28a 4.90ab 0.663 0.024
丙二醛 MDA/(nmol/mL) 4.64a 3.02b 2.79b 0.286 0.017
超氧化物歧化酶 SOD/(U/mL) 176.05 170.69 168.20 4.838 0.824
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 734.33 780.60 764.18 37.950 0.899

2.3 侧孢短芽孢杆菌对生长猪结肠形态结构和屏障功能的影响

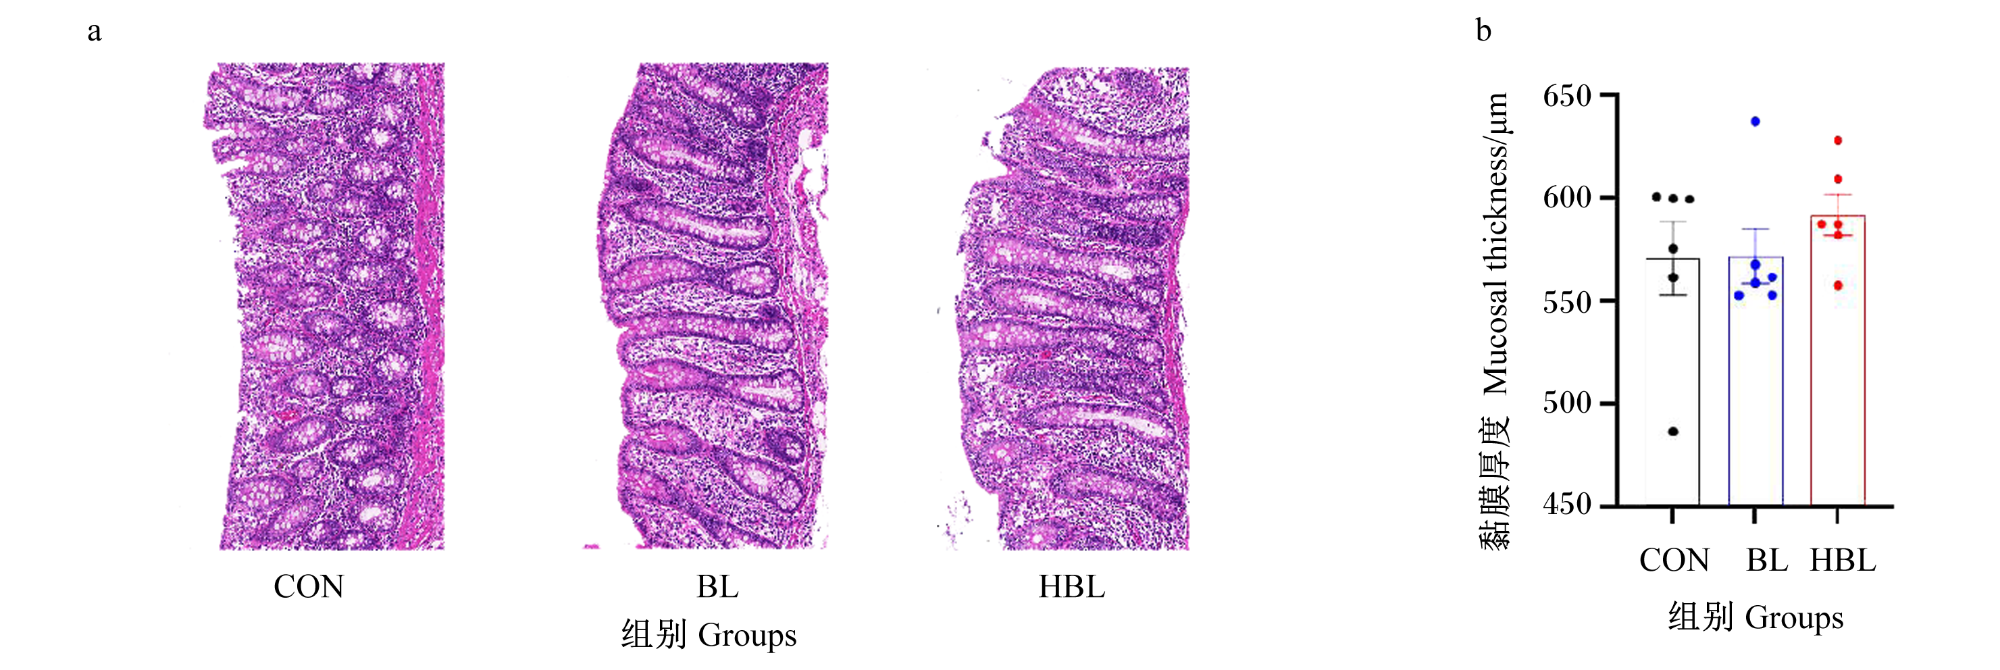
图1所示,与CON组相比,BL组和HBL组的结肠形态结构无明显变化。各组之间生长猪结肠黏膜厚度无显著差异(P>0.05)。以上结果表明,饲粮中添加侧孢短芽孢杆菌活菌或热灭活菌对生长猪结肠形态结构无显著影响。
图1 侧孢短芽孢杆菌对生长猪肠道形态结构的影响

*代表差异显著(P<0.05)。图3图4同。

Fig.1 Effects of Brevibacillus laterosporus on intestinal morphology of growing pigs (40×)

* indicated significant difference (P<0.05). The same as Fig.3 and Fig.4.

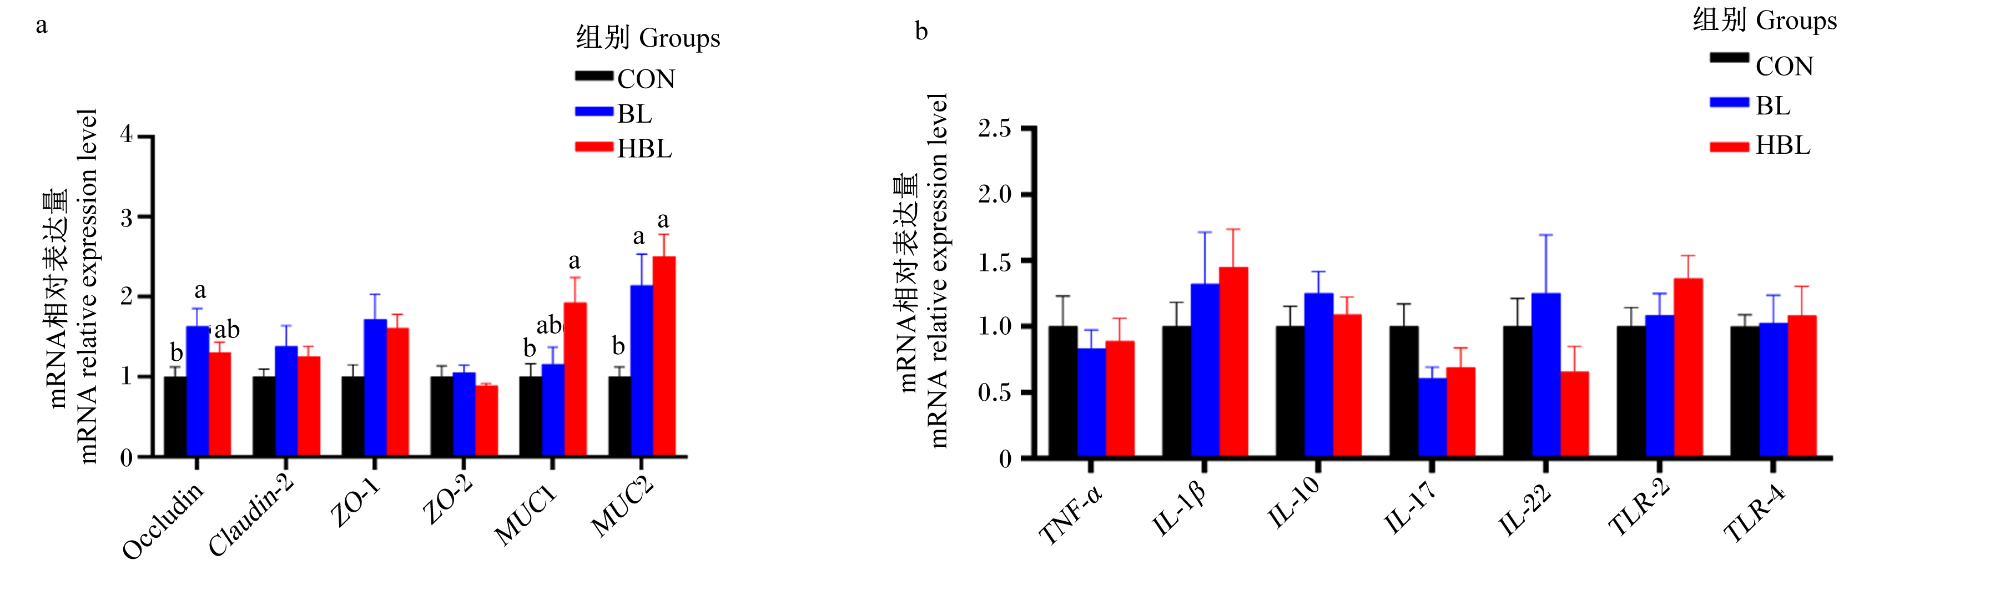
图2所示,与CON组相比,BL组和HBL组的结肠黏膜MUC2的mRNA相对表达量显著提高(P<0.05),BL组的结肠黏膜Occludin的mRNA相对表达量显著提高(P<0.05),HBL组的结肠黏膜MUC1的mRNA相对表达量显著提高(P<0.05)。各组之间生长猪结肠黏膜Claudin-2、ZO-1、ZO-2、TNF-αIL-1βIL-10、IL-17、IL-22、TLR-2、TLR-4的mRNA相对表达量无显著差异(P>0.05)。以上结果表明,饲粮中添加侧孢短芽孢杆菌活菌或热灭活菌有助于提高生长猪结肠黏膜MUC2的mRNA相对表达量,但对免疫因子的mRNA相对表达量无显著影响,对生长猪结肠黏膜没有免疫刺激。
图2 侧孢短芽孢杆菌对生长猪结肠黏膜紧密连接蛋白、黏蛋白和促炎因子表达的影响

Occludin:闭合蛋白;Claudin-2:闭锁蛋白-2;ZO-1:闭锁小带蛋白-1 zonula occludens-1;ZO-2:闭锁小带蛋白-2 zonula occludens-2;MUC1:黏蛋白1 mucin 1;MUC2:黏蛋白2 mucin 2;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-1β:白细胞介素-1β interleukin-1β;IL-10:白细胞介素-10 interleukin-10;IL-17:白细胞介素-17 interleukin-17;IL-22:白细胞介素-22 interleukin-22;TLR-2:Toll样受体-2 Toll like receptor-2;TLR-4:Toll样受体-4 Toll like receptor-4。

数据柱标相同或无小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。Value columns with the same or no small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05).

Fig.2 Effects of Brevibacillus laterosporus on expression of tight junction proteins, mucins and proinflammatory factors in colonic mucosa of growing pigs

2.4 侧孢短芽孢杆菌对生长猪结肠SCFAs含量的影响

表6所示,与CON组相比,BL组和HBL组的结肠乙酸和异戊酸含量显著提高(P<0.05),HBL组的结肠异丁酸含量显著提高(P<0.05)。各组之间生长猪结肠丙酸、丁酸、戊酸和总SCFAs含量无显著差异(P>0.05)。以上结果表明,饲粮中添加侧孢短芽孢杆菌活菌和热灭活菌有助于增加结肠乙酸和异戊酸含量。
表6 侧孢短芽孢杆菌对生长猪结肠SCFAs含量的影响

Table 6 Effects of Brevibacillus laterosporus on colon SCFAs contents of growing pigs μmol/g

项目
Items
组别 Groups SEM P
P-value
CON BL HBL
乙酸 Acetate 28.20b 36.39a 35.97a 1.400 0.015
丙酸 Propionate 18.21 19.44 18.38 0.940 0.861
异丁酸 Isobutyrate 1.51b 2.00b 2.31a 0.140 0.042
丁酸 Butyrate 10.59 12.46 12.24 0.770 0.589
异戊酸 Isovalerate 2.01b 2.83a 3.39a 0.240 0.046
戊酸 Valerate 2.96 2.81 2.66 0.330 0.940
总短链脂肪酸 Total SCFAs 63.48 75.93 74.93 3.110 0.197

2.5 侧孢短芽孢杆菌对生长猪结肠微生物群落的影响

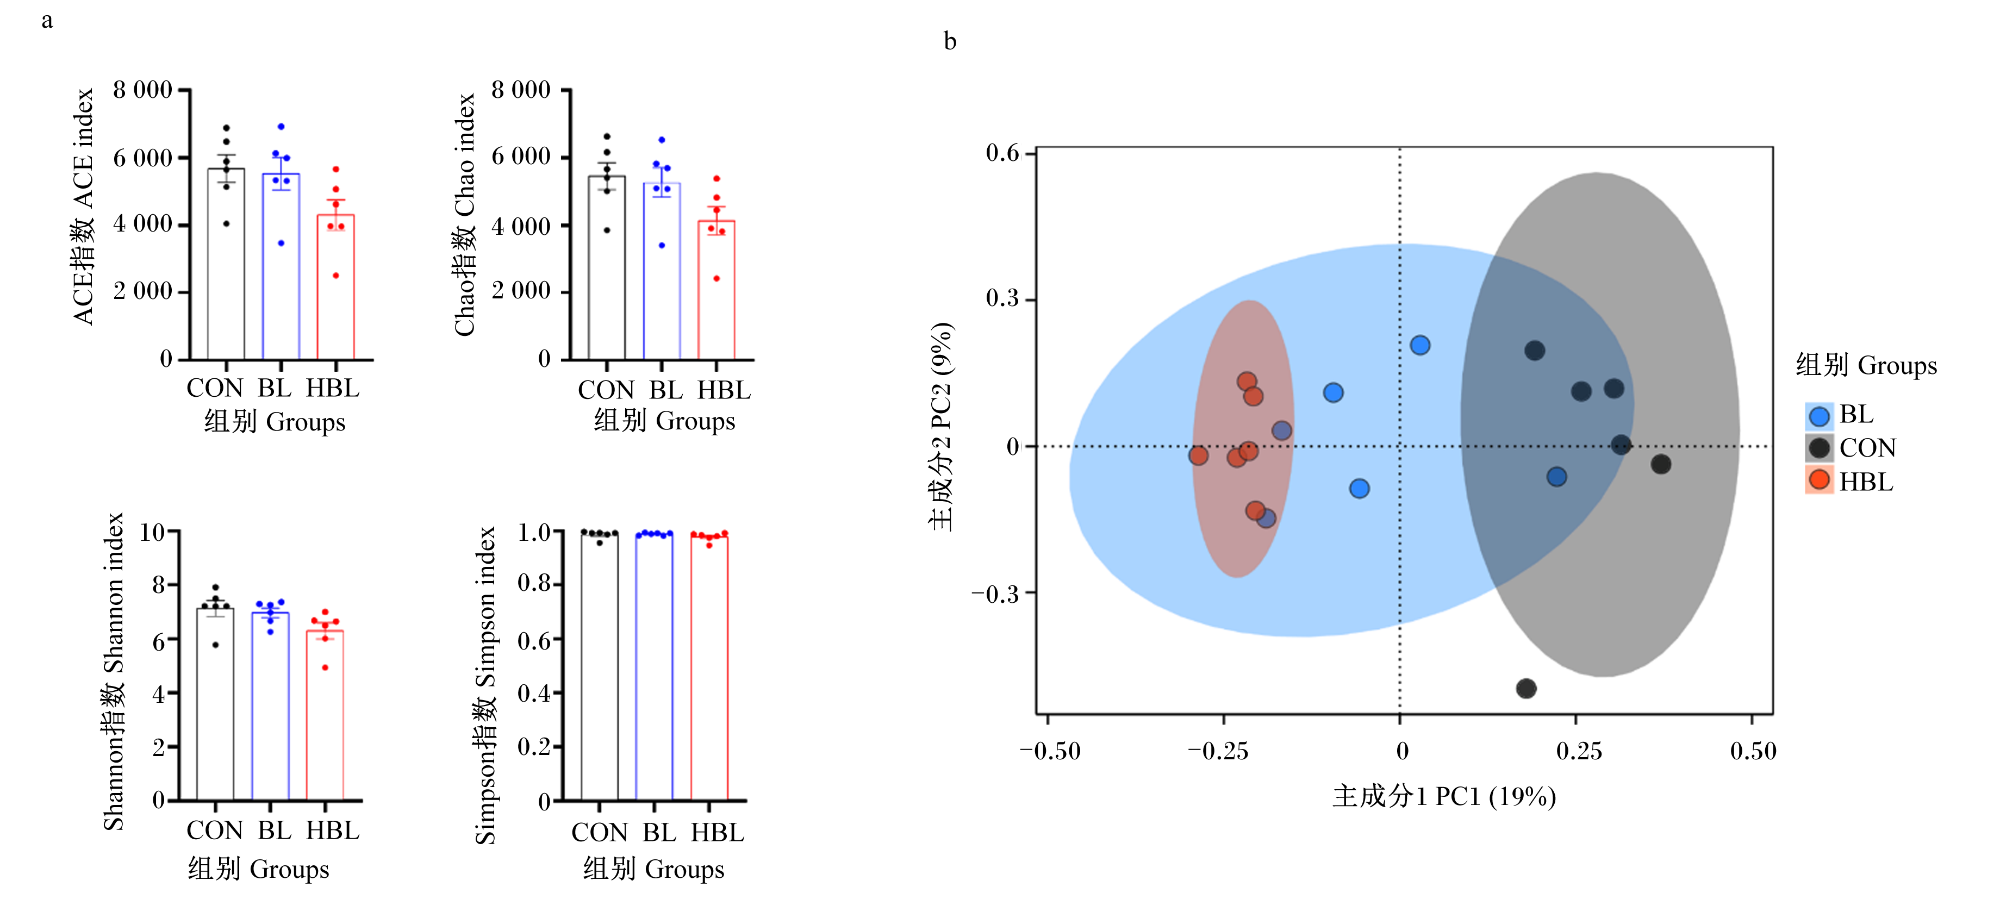
图3所示,各组之间生长猪结肠微生物α多样性指数(ACE、Chao、Shannon和Simpson指数)均无显著差异(P>0.05)。基于Bray-Curtis距离的PCoA进一步分析了各组结肠微生物结构和组成的整体差异,HBL组与BL组有一定重叠,表明2组微生物群落组成相近;CON组与BL组和HBL组之间微生物群落有差异,且与HBL组形成明显的分蔟,表明CON组与HBL组的微生物群落具有明显差异。以上结果表明,饲粮中添加侧孢短芽孢杆菌热灭活菌能够影响生长猪的结肠微生物组成。
图3 侧孢短芽孢杆菌对生长猪结肠微生物群落多样性的影响

Fig.3 Effects of Brevibacillus laterosporus on colonic microbial community diversity of growing pigs

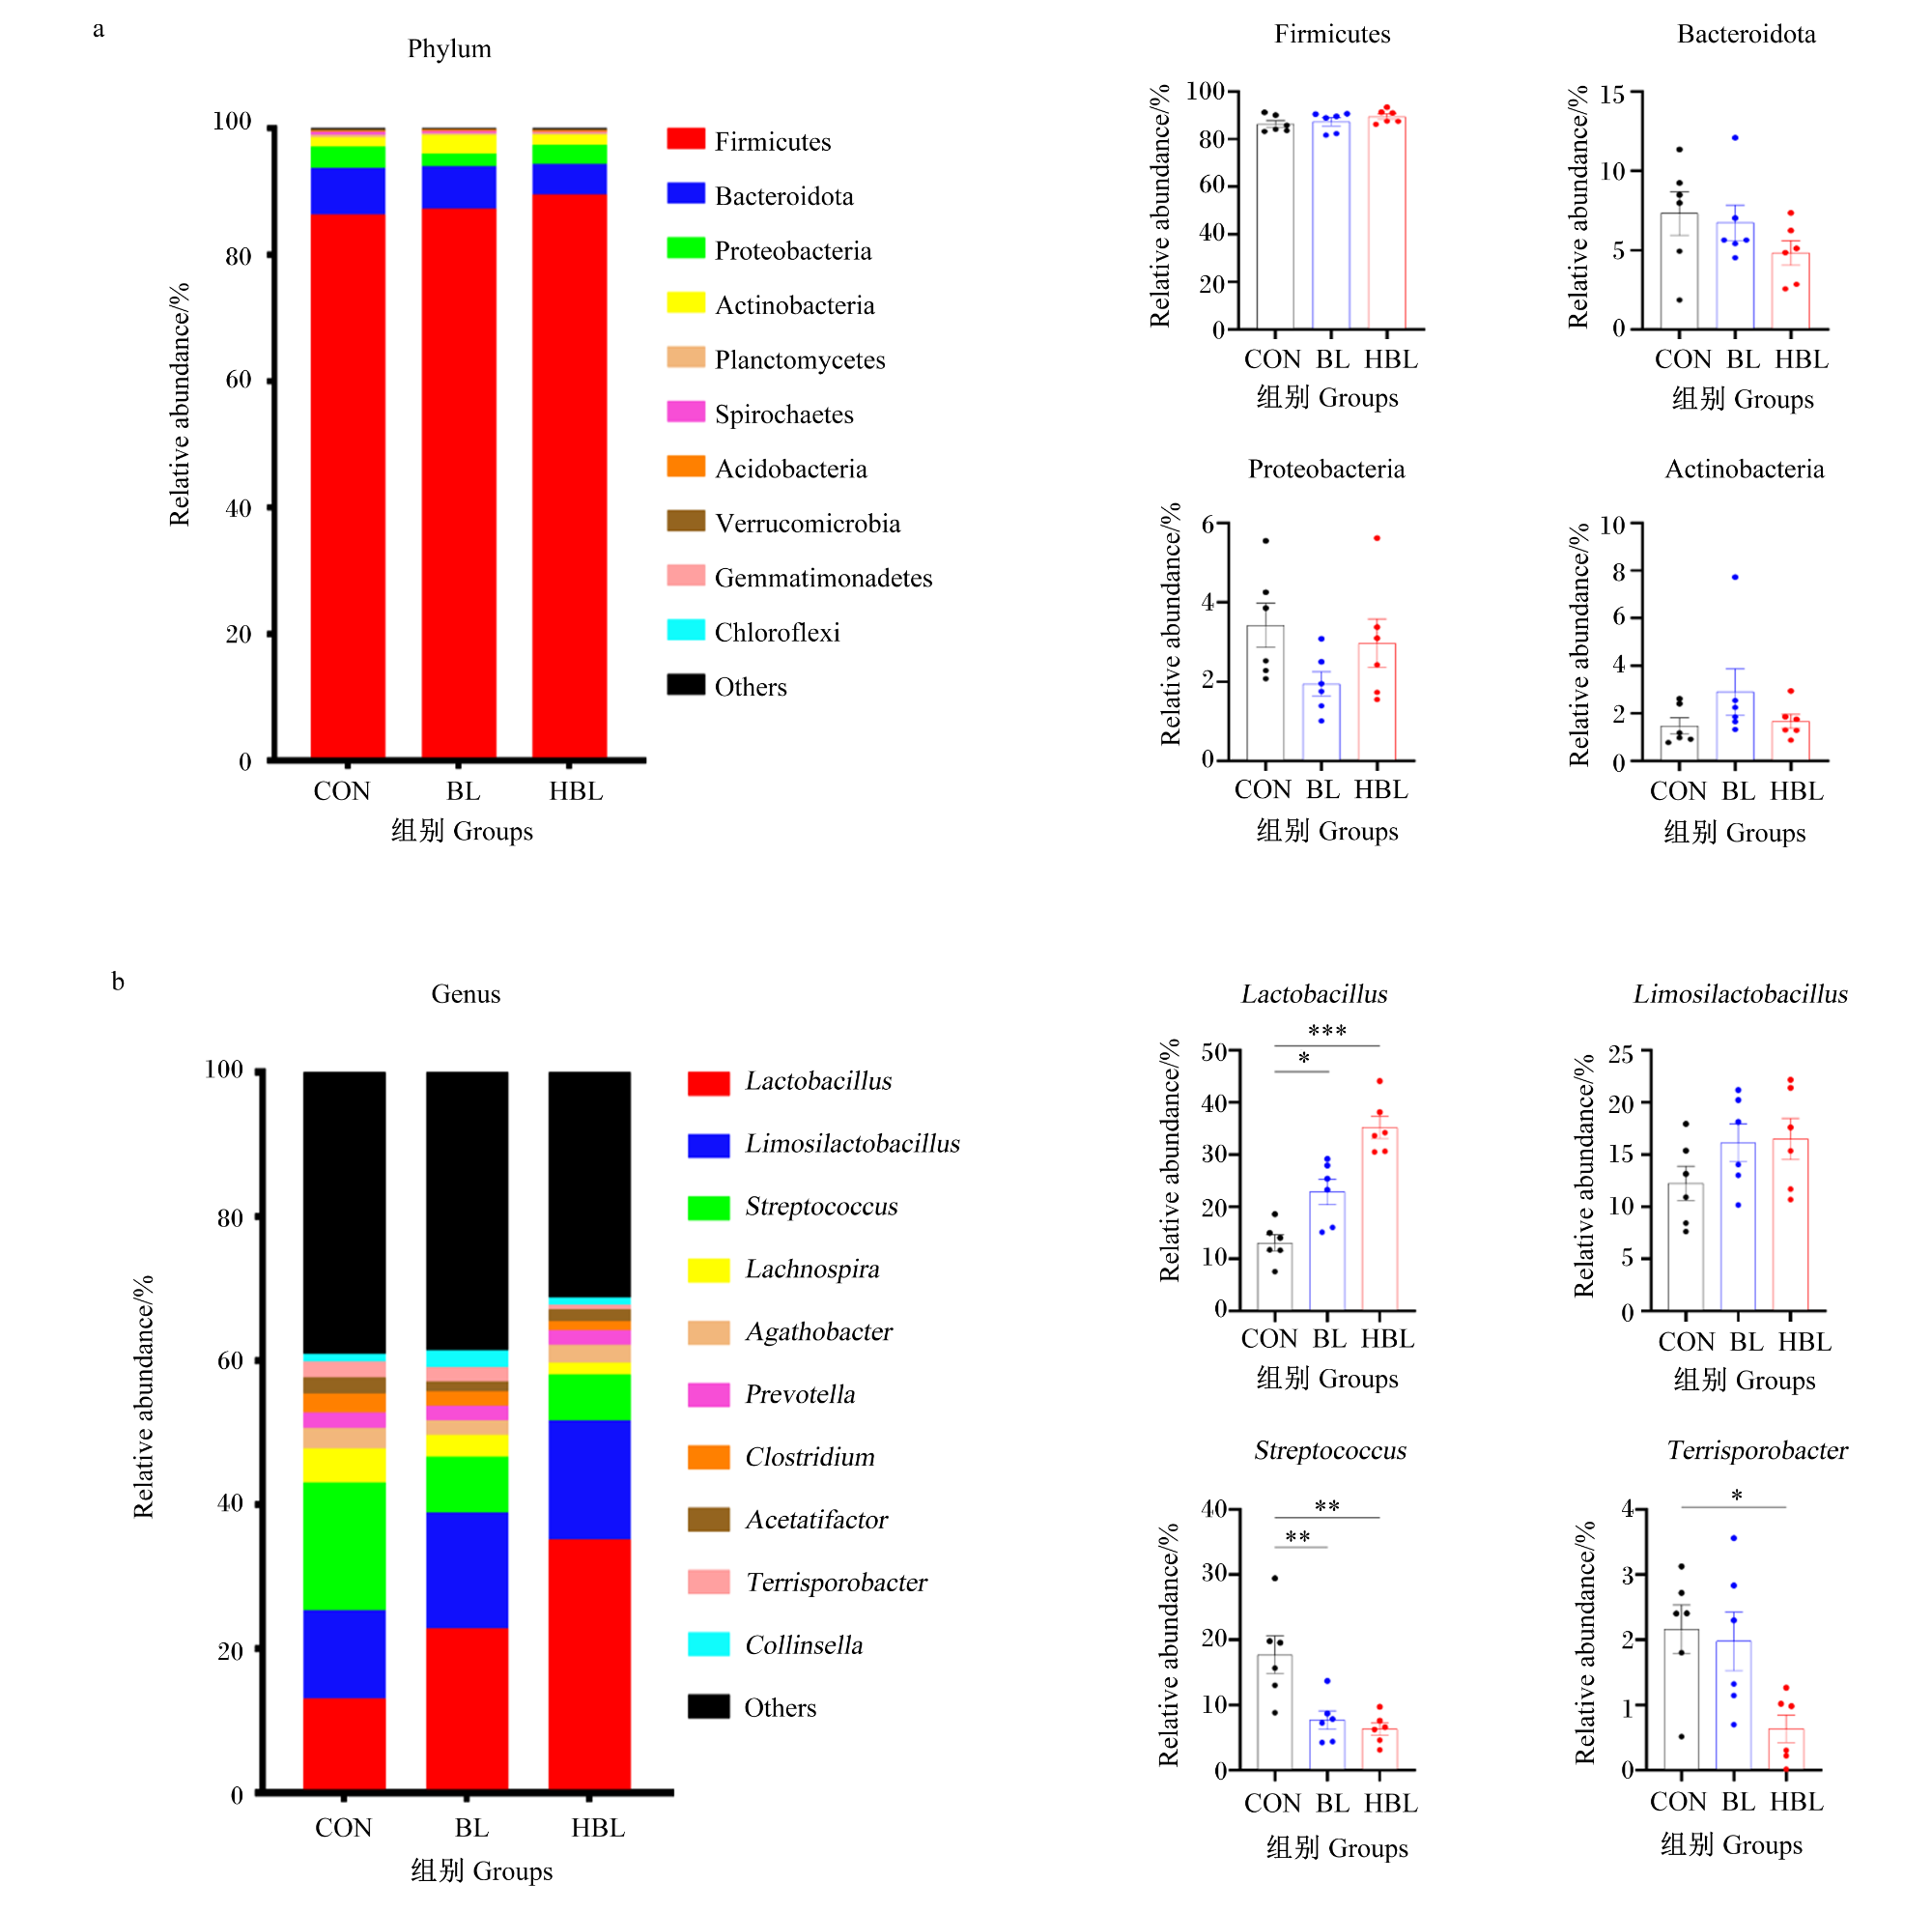
图4所示,在门水平上,3组结肠内容物微生物主要以厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)和变形菌门(Proteobacteria)为主,占90%左右,且其相对丰度在3组之间均无显著差异(P>0.05);在属水平上,与CON组相比,BL组和HBL组的结肠乳杆菌属(Lactobacillus)相对丰度极显著升高(P<0.01),BL组和HBL组的结肠链球菌属(Streptococcus)相对丰度显著降低(P<0.05),HBL组的结肠土孢杆菌属(Terrisporobacter)相对丰度显著降低(P<0.05)。
图4 侧孢短芽孢杆菌对生长猪结肠微生物组成的影响

Phylum:门;Genus:属;Relative abundance:相对丰度;Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Actinobacteria:放线菌门;Planctomycetes:浮霉菌门;Spirochaetes:螺旋体门;Acidobacteria:酸杆菌门;Verrucomicrobia:疣微菌门;Gemmatimonadetes:芽单胞菌门;Chloroflexi:绿弯菌门;Others:其他;Lactobacillus:乳杆菌属;Limosilactobacillus:黏液乳杆菌属;Streptococcus:链球菌属;Lachnospira:毛螺菌属;Agathobacter:琼脂杆菌属;Prevotella:普氏菌属;Clostridium:梭菌属;Acetatifactor:醋杆菌属;Terrisporobacter:土孢杆菌属;Collinsella:柯林斯菌属。

Fig.4 Effects of Brevibacillus laterosporus on colonic microbial composition of growing pigs

3 讨论

3.1 侧孢短芽孢杆菌对生长猪生长性能的影响

研究表明,大多数芽孢杆菌属益生菌对动物的生长性能有促进作用。例如,枯草芽孢杆菌能显著提高保育猪终末体重和ADG[13];地衣芽孢杆菌和凝结芽孢杆菌能改善仔猪的ADG和ADFI[14]。然而,本研究观察到一个值得关注的现象:饲粮中添加侧孢短芽孢杆菌活菌显著降低了生长猪的ADG。通过与之前研究结果比对发现,在育肥猪模型中也观察到类似结果:饲粮中添加侧孢短芽孢杆菌活菌显著降低了ADG,并使终末体重呈现下降趋势,并且其热灭活菌则未表现出此种抑制作用[11]。因此,可以推测侧孢短芽孢杆菌对生长性能的影响作用高度依赖其热敏感生物活性。在小鼠模型中发现,侧孢短芽孢杆菌具有调节脂肪代谢的功能,与高脂饲料组相比,侧孢短芽孢杆菌预处理使小鼠总增重减少41.26%,其机制涉及脂肪代谢相关基因的调控、棕色脂肪组织产热的促进以及肠道菌群结构的优化[9-10]。这些效应共同导致体脂沉积的减少和能量消耗的增加,为解释生长猪体重增长减缓提供了直接依据。此外,同属菌株的研究为此提供了旁证。从德克萨斯侧孢杆菌(BT)中提取的脂肽在治疗肥胖和相关疾病方面显示出潜力,在肥胖小鼠模型中,口服BT脂肽治疗30 d可减少内脏脂肪并改善脂肪肝[15],这提示脂肽类物质可能是其共同的关键活性成分之一。综上研究共同提示,侧孢短芽孢杆菌活菌对生长猪ADG的影响,可能源于该菌株通过其热敏性活性成分(如脂肽)影响宿主能量代谢与分配的调控,减少脂肪沉积,从而改变生长猪的增重模式。
然而,当前试验在添加剂量设置上存在一定局限性,未来研究可聚焦于不同添加剂量对动物生长性能的效应关系,并解析其关键活性成分,为侧孢短芽孢杆菌在畜牧生产中的科学、安全应用提供充分依据。

3.2 侧孢短芽孢杆菌对生长猪血清生化和抗氧化指标的影响

血清生化指标与机体组织器官发育有关,并影响营养代谢。血清T-CHO、LDL-C、HDL-C含量可以反映机体糖和脂代谢状态和速率[16]。在本试验中,饲粮中添加侧孢短芽孢杆菌活菌可显著提高生长猪血清HDL-C含量,同时显著降低血清T-CHO和LDL-C含量,此发现与付立[8]的研究结果相吻合。此外,本课题组在前期研究中也观察到类似现象,活菌干预能显著降低高脂饮食诱导的肥胖小鼠的血清TG、T-CHO及LDL-C水平[9-10],该结果进一步支持了侧孢短芽孢杆菌活菌在调节脂代谢方面的积极作用。此外,本试验中,饲粮中添加侧孢短芽孢杆菌热灭活菌也能显著降低血清中T-CHO、LDL-C含量,表明侧孢短芽孢杆菌无论是活菌还是热灭活菌形式,均具有改善宿主脂质代谢、调节血脂水平的功能。
氧化应激是机体活性氧过量累积,导致自由基大量生成的一种状态,这会对脂质、蛋白质与DNA等生物大分子造成氧化损伤,进而影响动物生长。机体内主要的自由基代谢酶,包括SOD、CAT和GSH-Px,是衡量机体抗氧化能力的关键指标,它们能够清除自由基,从而降低机体产生的氧化应激损伤[17]。T-AOC是衡量机体总抗氧化能力的指标,反映机体非酶抗氧化物质和酶促抗氧化构成的总体抗氧化能力。MDA具有极高的生物毒性,能破坏饲料蛋白质、脂质、维生素等结构,并损害动物机体肠道健康,诱发炎症反应[18]。机体内MDA的累积量能够间接反映机体组织的氧化损伤程度。CAT是催化过氧化氢分解为水和氧分子的血红素酶,是几乎所有有氧生物细胞抗氧化防御系统的重要组成部分[19]。在本试验中,饲粮中添加侧孢短芽孢杆菌活菌显著降低了生长猪血清MDA含量,并显著提高了血清CAT活性;饲粮中添加侧孢短芽孢杆菌热灭活菌显著降低了生长猪血清MDA含量,并显著提高了血清T-AOC,说明侧孢短芽孢杆菌活菌和热灭活菌都能有效提高生长猪的抗氧化能力,减轻氧化损伤,从而帮助维持生长猪的健康状态。

3.3 侧孢短芽孢杆菌对生长猪肠道健康的影响

肠道屏障功能的完整性是维持肠道健康的核心基础,若肠道屏障受损,则会造成肠道功能紊乱[20]。影响肠道健康的因素主要包括肠道屏障功能和肠道消化吸收功能,完整的肠道屏障可有效阻挡有害物质通过,对维持动物健康至关重要[21]。肠道物理屏障是肠黏膜屏障的重要组成部分,由黏液、肠上皮细胞和肠上皮细胞之间的紧密连接组成[22]。紧密连接则由Occludin、Claudin-2、ZO-1等紧密连接蛋白组成[23]。肠道化学屏障可以防止致病性抗原侵入,并为肠道共生菌和外源益生菌提供黏附结合位点,其中的关键成分是黏蛋白[24]。黏蛋白不仅可润滑和保护肠黏膜,还可在上皮细胞的信号转导、细胞间的黏附以及活化免疫细胞等方面发挥重要作用[25]
本研究通过组织形态学观察及基因表达分析,综合评估了侧孢短芽孢杆菌及其热灭活菌对生长猪结肠屏障的影响。组织形态学结果显示,饲粮中添加侧孢短芽孢杆菌活菌或热灭活菌后,生长猪结肠的形态结构与黏膜厚度与CON组相比均无显著差异。这表明在本试验条件下,侧孢短芽孢杆菌的添加并未引起结肠组织的形态学改变。然而,在分子水平上,本试验观察到了积极的调控作用,结果显示,饲粮中添加侧孢短芽孢杆菌活菌能够显著提高生长猪结肠黏膜Occludin的mRNA相对表达量,提示侧孢短芽孢杆菌可能通过增强紧密连接结构来降低生长猪的肠道通透性。这一结果与本课题组前期的研究结果相类似,即侧孢短芽孢杆菌能有效逆转高脂饮食诱导的小鼠肠道紧密连接蛋白基因[ZO-1、Occludin和闭锁蛋白-1(Claudin-1)]表达的下调,从而增强小鼠肠道屏障完整性[9]。此外,MUC1在黏膜环境中的生理功能已被证实在保护宿主免受多种病原体感染以及调节对感染的炎症反应中发挥动态作用[26]MUC2主要在杯状细胞中表达,是分泌型黏蛋白中具有最显著作用的一种[27]。研究表明,益生菌和一些灭活益生菌均能够调控动物肠道中黏蛋白表达。例如,饲喂罗伊氏乳杆菌能显著上调断奶仔猪结肠的肠道屏障相关的基因(MUC1、MUC2)表达[28]。而灭活副干酪乳杆菌(Lactobacillus paracasei,其有效成分为脂磷壁酸)可通过干扰TLR-2/p38-丝裂原活化蛋白激酶(p38-MAPK)/核因子-κB(NF-κB)信号通路,增加小鼠肠道中MUC2的mRNA相对表达量,从而提高肠道屏障功能的完整性[29]。与上述结果一致,本研究结果显示,虽然结肠形态结构未见改变,但饲粮中添加侧孢短芽孢杆菌活菌能显著提高生长猪结肠黏膜MUC2的mRNA相对表达量,饲粮中添加热灭活菌能显著提高生长猪结肠黏膜MUC1、MUC2的mRNA相对表达量,这些分子层面的基因表达上调,可能先于或独立于明显的组织形态变化,通过增强黏液层和紧密连接功能,潜在地巩固了肠道的化学与物理屏障。同时,各组之间炎症相关因子表达无显著差异,表明侧孢短芽孢杆菌在改善屏障基因表达的同时,并未引起不必要的肠道免疫激活。尽管本研究未观察到结肠形态结构的改变,但关键屏障基因的表达上调提示,在健康生理状态下,侧孢短芽孢杆菌的作用可能优先发生于分子与功能层面。

3.4 侧孢短芽孢杆菌对生长猪结肠SCFAs含量的影响

SCFAs是由肠道内微生物发酵不可消化的碳水化合物产生的,主要包括乙酸、丙酸、戊酸、丁酸、异丁酸、异戊酸等,其中丁酸作为代表物质,是肠道细胞的主要能量来源[30]。作为畜禽后肠道菌群发酵的重要代谢产物,SCFAs具有维持肠道稳态和健康、参与肠道免疫调节和肝脏中糖、脂代谢等功能[31]。Ding等[32]研究表明,饲粮中添加枯草芽孢杆菌显著提高了断奶仔猪结肠中丙酸、异丁酸和异戊酸含量,有提高乙酸含量的趋势。本研究中,饲粮中添加侧孢短芽孢杆菌活菌和热灭活菌均能显著提高生长猪结肠乙酸、异戊酸含量,饲粮中添加侧孢短芽孢杆菌热灭活菌还能显著提高生长猪结肠异丁酸含量,与Ding等[32]的研究结果相似,表明侧孢短芽孢杆菌活菌和热灭活菌均能提高生长猪肠道SCFAs含量,改善肠道健康。

3.5 侧孢短芽孢杆菌对生长猪结肠微生物群落的影响

肠道作为动物体内最复杂的微生态系统,其微生物群落通过参与营养物质的消化吸收、能量代谢及免疫调节等过程,在维持宿主健康与生长中扮演关键角色[33]。本研究结果显示,虽然饲粮中添加侧孢短芽孢杆菌活菌或热灭活菌对结肠微生物群落的丰富度(ACE、Chao指数)和多样性(Shannon、Simpson指数)均未产生显著影响,但饲粮中添加侧孢短芽孢杆菌热灭活菌却改变了微生物群落结构,该结果与Kikusato等[34]的研究结果相似。在门水平上,厚壁菌门和拟杆菌门为各组生长猪结肠中的主要优势菌门,这与猪健康的肠道菌群组成特征相符[35]。在属水平上,饲粮中添加侧孢短芽孢杆菌活菌和热灭活菌均显著提高了结肠乳杆菌属相对丰度,同时显著降低了结肠链球菌属相对丰度;此外,饲粮中添加侧孢短芽孢杆菌热灭活菌还显著降低了结肠土孢杆菌属相对丰度。乳杆菌属作为常见的益生菌群,其代表性菌种如鼠李糖乳杆菌和植物乳杆菌,能够产生乙酸、乳酸或其他抗菌物质,从而有助于抑制病原菌定植,维护肠道健康[36-37]。相反,链球菌属是重要的猪源及人畜共患病原体,可导致脑膜炎、败血症等多种疾病[38]。而土孢杆菌属则被认为与肥胖促进及血脂水平上升有关[39],这一发现也与本研究中HBL组生长性能有所降低的结果相互呼应。
综上所述,侧孢短芽孢杆菌活菌或热灭活菌可通过调控动物肠道微生物菌群结构,有效促进乳杆菌属等有益菌的增殖,抑制链球菌属和土孢杆菌属等潜在有害菌的繁殖,进而增强机体的抗病能力,维持肠道微生态平衡和整体健康。值得强调的是,当前结论基于单一剂量得出,未来研究应通过设立多剂量梯度,系统揭示活菌与灭活菌体的量效关系及其深层机制,以期为侧孢短芽孢杆菌在养殖生产中的精准、安全应用提供更坚实的理论依据。

4 结论

饲粮中添加侧孢短芽孢杆菌活菌和热灭活菌能够增强生长猪肠道屏障,优化肠道微生物菌群结构,从而改善肠道健康。在本试验条件下,侧孢短芽孢杆菌热灭活菌展现出比活菌更具应用前景的综合效益。
[1]
陈潺, 陈升富, 王建宇, 等. 侧孢短芽孢杆菌的应用研究进展[J]. 山东农业科学, 2015, 47(2):149-156.

CHEN C, CHEN S F, WANG J Y, et al. Research progress on application of Brevibacillus laterosporus[J]. Shandong Agricultural Sciences, 2015, 47(2):149-156. (in Chinese)

[2]
RUIU L. Brevibacillus laterosporus,a pathogen of invertebrates and a broad-spectrum antimicrobial species[J]. Insects, 2013, 4(3):476-492.

DOI

[3]
邢芳芳, 宋涛, 徐文凤, 等. 侧孢芽孢杆菌在生防中的应用及研究进展[J]. 山东农业科学, 2014, 46(6):146-149.

XING F F, SONG T, XU W F, et al. Application of Bacillus laterosporus in biological prevention and research advances[J]. Shandong Agricultural Sciences, 2014, 46(6):146-149. (in Chinese)

[4]
张丹, 王志新, 李兴峰, 等. 侧孢短芽孢杆菌S62-9对常见微生物的体外抑菌作用[J]. 中国食品学报, 2017, 17(1):55-61.

ZHANG D, WANG Z X, LI X F, et al. In vitro antagonistic activities of Brevibacillus laterosporus S62-9 against common microorganisms[J]. Journal of Chinese Institute of Food Science and Technology, 2017, 17(1):55-61. (in Chinese)

[5]
孙小涵, 孙洪浩, 陈秀秀, 等. 一株具有抑菌活性的芽孢杆菌的分离鉴定及生物特性研究[J]. 饲料研究, 2020, 43(8):80-85.

SUN X H, SUN H H, CHEN X X, et al. Isolating,identification and biological characteristics of a Brevibacillus laterosporus strain with antibacterial activity[J]. Feed Research, 2020, 43(8):80-85. (in Chinese)

[6]
SU X X, WAN T T, GAO Y D, et al. Action mechanism of the potential biocontrol agent Brevibacillus laterosporus SN19-1 against Xanthomonas oryzae pv. oryzae causing rice bacterial leaf blight[J]. Archives of Microbiology, 2024, 206(1):40.

DOI

[7]
刘育成, 翁光英, 宋敏, 等. 饲喂侧孢短芽孢杆菌对清远麻鸡生长性能、血清抗氧化指标及肠道微生物的影响[J]. 广东畜牧兽医科技, 2024, 49(1):26-32.

DOI

LIU Y C, WENG G Y, SONG M, et al. Effects of feeding Brevibacillus laterosporus on performance,serum antixidant and gut microorganisms of Qingyuan partridge broilers[J]. Guangdong Journal of Animal and Veterinary Science, 2024, 49(1):26-32. (in Chinese)

[8]
付立. 日粮中添加侧孢短芽孢杆菌对肉鸡生产性能的影响及机制研究[D].硕士学位论文. 泰安: 山东农业大学, 2023.

FU L. Effects and mechanism of adding Bacillus lateralis to the diet on the performance of broilers[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2023. (in Chinese)

[9]
WENG G Y, MA X Y, YU M, et al. Brevibacillus laterosporus BL1 improves intestinal barrier function and immune homeostasis and modulates gut microbiota in high-fat diet-fed mice[J]. Journal of the Science of Food and Agriculture, 2025, 105(13):7557-7567.

DOI

[10]
WENG G Y, HUANG J, MA X Y, et al. Brevibacillus laterosporus BL1,a promising probiotic,prevents obesity and modulates gut microbiota in mice fed a high-fat diet[J]. Frontiers in Nutrition, 2022, 9:1050025.

DOI

[11]
WENG G Y, YU M, DENG C X, et al. Effects of dietary Brevibacillus laterosporus BL1 supplementation on meat quality,antioxidant capacity,and the profiles of muscle amino acids and fatty acids in finishing pigs[J]. Meat Science, 2025, 219:109646.

DOI

[12]
LIU Y C, LI Y F, YU M, et al. Magnolol supplementation alters serum parameters,immune homeostasis,amino acid profiles,and gene expression of amino acid transporters in growing pigs[J]. International Journal of Molecular Sciences, 2023, 24(18):13952.

DOI

[13]
李晶, 董滢. 枯草芽孢杆菌对保育猪生长性能、肠道形态、血清生化和免疫指标的影响[J]. 中国畜牧兽医, 2025, 52(2):678-685.

DOI

LI J, DONG Y. Effects of Bacillus subtilis on growth performance,intestinal morphology,serum biochemical and immune indexes in nursery pigs[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(2):678-685. (in Chinese)

[14]
甘书灏, 唐胤晟, 张朝忠, 等. 不同芽孢杆菌对仔猪生长性能、全肠道养分消化率、血清生化指标及免疫球蛋白的影响[J]. 中国畜牧杂志, 2025, 61(6):351-355.

GAN S H, TANG Y S, ZHANG C Z, et al. Effect of different Bacillus strains on growth performance,total intestinal nutrient digestibility,serum biochemical indicators and immunoglobulins in piglets[J]. Chinese Journal of Animal Science, 2025, 61(6):351-355. (in Chinese)

[15]
MyGalaxy Ltd Company. Uses of BT lipopeptides as therapeutics for obesity and related diseases:EP13866071A[P]. 2013-12-17.

[16]
ZHANG S Y, TANG Z Y, ZHENG C B, et al. Dietary beta-hydroxy-beta-methyl butyrate supplementation inhibits hepatic fat deposition via regulating gut microbiota in broiler chickens[J]. Microorganisms, 2022, 10(1):169.

DOI

[17]
夏鑫. 桑叶提取物对小鼠生长性能、抗氧化、免疫功能及体外抑菌的作用研究[D].硕士学位论文. 长沙: 湖南农业大学, 2020.

XIA X. Study on the effects of extracts from mulberry leaves on the growth performance,antioxidant,immune function of mice and bacteriostatic effect in vitro[D].Master’s Thesis. Changsha: Hunan Agricultural University, 2020. (in Chinese)

[18]
彭聪, 谭北平, 林祥钦, 等. 丙二醛对水产饲料及水产动物健康影响的研究进展[J]. 动物营养学报, 2024, 36(9):5497-5509.

DOI

PENG C, TAN B P, LIN X Q, et al. Research progress on effects of malondialdehyde on aquatic feed and aquatic animals’ health[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5497-5509. (in Chinese)

DOI

[19]
GEBICKA L, KRYCH-MADEJ J. The role of catalases in the prevention/promotion of oxidative stress[J]. Journal of Inorganic Biochemistry, 2019, 197:110699.

DOI

[20]
郜璐瑶, 李袁飞, 梅华迪, 等. 丝兰提取物的生物学功能及其在猪和家禽生产中的应用研究进展[J]. 动物营养学报, 2024, 36(11):6882-6893.

DOI

GAO L Y, LI Y F, MEI H D, et al. Advances in biological functions of Yucca schidigera extract and its application in swine and poultry production[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):6882-6893. (in Chinese)

[21]
牛晓雨, 邢媛媛, 李大彪. 植物活性成分对动物肠道屏障功能的调控作用及其机制[J]. 畜牧兽医学报, 2024, 55(4):1467-1477.

DOI

NIU X Y, XING Y Y, LI D B. Advances in regulation and mechanism of plant bioactive compounds on intestinal barrier function in animals[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(4):1467-1477. (in Chinese)

DOI

[22]
AN J, LIU Y Q, WANG Y Q, et al. The role of intestinal mucosal barrier in autoimmune disease:a potential target[J]. Frontiers in Immunology, 2022, 13:871713.

DOI

[23]
BALDA M S, MATTER K. Tight junctions[J]. Current Biology, 2023, 33(21):R1135-R1140.

DOI

[24]
邢肖伟, 陶金华, 江曙, 等. 肠道菌群影响黏膜屏障结构与功能的研究进展[J]. 中国微生态学杂志, 2018, 30(6):725-730.

XING X W, TAO J H, JIANG S, et al. The impacts of intestinal microflora on the structure and functions of intestinal mucosal barrier:research progress[J]. Chinese Journal of Microecology, 2018, 30(6):725-730. (in Chinese)

[25]
MCGUCKIN M A, LINDÉN S K, SUTTON P, et al. Mucin dynamics and enteric pathogens[J]. Nature Reviews Microbiology, 2011, 9(4):265-278.

DOI PMID

[26]
DHAR P, MCAULEY J. The role of the cell surface mucin MUC1 as a barrier to infection and regulator of inflammation[J]. Frontiers in Cellular and Infection Microbiology, 2019, 9:117.

DOI PMID

[27]
LIU Y, YU X J, ZHAO J X, et al. The role of MUC2 mucin in intestinal homeostasis and the impact of dietary components on MUC2 expression[J]. International Journal of Biological Macromolecules, 2020, 164:884-891.

DOI PMID

[28]
刘春艳. 猪源罗伊氏乳杆菌对断奶仔猪肠道屏障功能和细胞外基质的影响[D].硕士学位论文. 南宁: 广西大学, 2023.

LIU C Y. Effects of Lactobacillus reuteri from pigs on intestinal barrier function and extracellular matrix of weaned piglets[D].Master’s Thesis. Nanning: Guangxi University, 2023. (in Chinese)

[29]
WANG S H, AHMADI S, NAGPAL R, et al. Lipoteichoic acid from the cell wall of a heat killed Lactobacillus paracasei D3-5 ameliorates aging-related leaky gut,inflammation and improves physical and cognitive functions:from C. elegans to mice[J]. GeroScience, 2020, 42(1):333-352.

DOI

[30]
李航, 刘杰, 刘祝英, 等. 几种常见脂肪酸对动物肠道健康的影响及其在动物生产中的应用研究进展[J]. 动物营养学报, 2025, 37(12):8144-8154.

DOI

LI H, LIU J, LIU Z Y, et al. Research progress on effects of several common fatty acids on animal intestinal health and their application in animal production[J]. Chinese Journal of Animal Nutrition, 2025, 37(12):8144-8154. (in Chinese)

DOI

[31]
吴星, 司素锦, 任阳光, 等. 短链脂肪酸的生理功能及其在肉鸡生产中的应用[J]. 中国家禽, 2022, 44(9):101-106.

WU X, SI S J, REN Y G, et al. Physiological function of short-chain fatty acids and their application in broiler production[J]. China Poultry, 2022, 44(9):101-106. (in Chinese)

[32]
DING H, ZHAO X, MA C, et al. Dietary supplementation with Bacillus subtilis DSM 32315 alters the intestinal microbiota and metabolites in weaned piglets[J]. Journal of Applied Microbiology, 2021, 130(1):217-232.

DOI

[33]
KOH A, DE VADDER F, KOVATCHEVA-DATCHARY P, et al. From dietary fiber to host physiology:short-chain fatty acids as key bacterial metabolites[J]. Cell, 2016, 165(6):1332-1345.

DOI

[34]
KIKUSATO M, NAMAI F. Effect of Bacillus hisashii supplementation on the growth performance,nitrogen excretion,and intestinal microbiota of broiler chickens fed low crude protein diet[J]. Animal Science Journal, 2025, 96(1):e70088.

DOI

[35]
RECHARLA N, KIM D, RAMANI S, et al. Dietary multi-enzyme complex improves in vitro nutrient digestibility and hind gut microbial fermentation of pigs[J]. PLoS One, 2019, 14(5):e0217459.

DOI

[36]
ZHANG L H, WANG L, YI L H, et al. A novel antimicrobial substance produced by Lactobacillus rhamnous LS8[J]. Food Control, 2017, 73(Pt B):754-760.

DOI

[37]
MAO Y, ZHANG X J, XU Z H. Identification of antibacterial substances of Lactobacillus plantarum DY-6 for bacteriostatic action[J]. Food Science & Nutrition, 2020, 8(6):2854-2863.

DOI

[38]
HAAS B, GRENIER D. Isolation,characterization and biological properties of membrane vesicles produced by the swine pathogen Streptococcus suis[J]. PLoS One, 2015, 10(6):e0130528.

DOI

[39]
LEE S H, YOU H S, KANG H G, et al. Association between altered blood parameters and gut microbiota after synbiotic intake in healthy,elderly Korean women[J]. Nutrients, 2020, 12(10):3112.

DOI

Outlines

/