RESEARCH PAPER

Protective Effects of Sodium Selenite Against Deoxynivalenol-Induced Intestinal Injury in Chicken Embryos

  • ZHAO Peng , 1 ,
  • SUN Jieyu 2 ,
  • LIU Jie 1 ,
  • ZHENG Hao 2 ,
  • CHEN Fu , 2, * ,
  • DONG Wenxuan , 2, *
Expand
  • 1 School of Ecological and Environment, Baotou Teachers’ College, Inner Mongolia University of Science and Technology, Baotou 014030, China
  • 2 College of Veterinary Medicine, Qingdao Agricultural University, Qingdao 266109, China
* CHEN Fu, professor, E-mail: ;
DONG Wenxuan, professor, E-mail:

Received date: 2025-12-26

  Online published: 2026-06-13

Abstract

This study aimed to investigate the protective effect and underlying mechanism of sodium selenite (Na2SeO3) against deoxynivalenol (DON)-induced intestinal injury in chicken embryos. Intestinal epithelial cells (IECs) were isolated from the intestinal tissue of 15-day-old chicken embryos. The cell density was adjusted to 1.5×10⁵ cells/mL, and the cells were plated into 96-well plates at 100 μL per well. After cell adhesion, 10 μL of complete medium (control group), 5 μmol/L Na2SeO3 (Na2SeO3 group), 2 μg/mL DON (DON group), or 2 μg/mL DON+5 μmol/L Na2SeO3 (DON+ Na2SeO3 group) was added, and the cells were further incubated for 24 hours. Separately, 9-day-old chicken embryos were randomly divided into four groups, each group consisted of 5 replicates with 20 eggs per replicate. According to a dose of 100 μL per 50 g of egg weight, each chicken embryo received an injection of sterile ultrapure water (control group), 0.43 μg Na2SeO3 (Na2SeO3 group), 10 μg DON (DON group) or 10 μg DON+0.43 μg Na2SeO3 (DON+ Na2SeO3 group). DON and Na2SeO3 were dissolved in 100 μL of sterile ultrapure water and injected aseptically into the allantoic cavity. The chicken embryos were then further incubated until hatching at 21 days of age. The results showed as follows: 1) DON exposure significantly decreased the intestinal weight and intestinal index of chicks (P<0.05), significantly increased plasma malondialdehyde (MDA) content (P<0.05), extremely significantly increased plasma hydrogen peroxide (H2O2) content (P<0.01), significantly decreased plasma total antioxidant capacity (T-AOC) (P<0.05), and induced ultrastructural damage such as mitochondrial cristae swelling and rupture. Na2SeO3 intervention partially reversed the decrease in intestinal index, enhanced antioxidant capacity, and alleviated mitochondrial structural damage. 2) At the cellular level, DON exposure caused an extremely significant decrease in the proliferation viability of chicken embryo IECs (P<0.01), significantly increased intracellular MDA content (P<0.05), extremely significantly increased intracellular H2O2 content (P<0.01), extremely significantly decreased intracellular T-AOC (P<0.01), and significantly increased intracellular reactive oxygen species (ROS) level (P<0.05). Na2SeO3 intervention reversed these changes. 3) In terms of molecular mechanisms, DON extremely significantly upregulated the mRNA relative expression levels of mammalian target of rapamycin (mTOR) and ubiquitin-binding protein p62 (SQSTM1) in chicken embryo IECs (P<0.01), while extremely significantly downregulated the mRNA relative expression level of microtubule-associated protein light chain 3 (LC3) (P<0.01). Na2SeO3 intervention restored these DON-induced abnormalities in autophagy-related gene expression. In conclusion, Na2SeO3, via its antioxidant properties, can scavenge excessive ROS, ameliorate oxidative stress, and regulate the autophagy signaling pathway. These actions collectively alleviate DON-induced mitochondrial damage, oxidative stress, and autophagic flux disruption in the intestine, thereby exerting a protective effect. This study provides an experimental basis for understanding the intestinal toxicity mechanism of DON and developing selenium-based nutritional intervention strategies.

Cite this article

ZHAO Peng , SUN Jieyu , LIU Jie , ZHENG Hao , CHEN Fu , DONG Wenxuan . Protective Effects of Sodium Selenite Against Deoxynivalenol-Induced Intestinal Injury in Chicken Embryos[J]. Chinese Journal of Animal Nutrition, 2026 , 38(6) : 4162 -4173 . DOI: 10.12418/CJAN2026.334

脱氧雪腐镰刀菌烯醇(DON),又称呕吐毒素,是一种对畜禽养殖业危害极大的真菌毒素,广泛存在于被镰刀菌属真菌污染的谷物及其制品中[1-2]。该毒素分子结构稳定,兼具耐高温特性与有机溶剂溶解性,常规烹饪及加工手段难以将其有效降解[3-4]。DON对不同畜禽物种的毒性存在显著种属差异[5],其毒性作用具有组织选择性,尤其偏好攻击快速增殖的细胞与组织(如肠道黏膜上皮)[6]。DON的毒性机制主要表现为:破坏肠道黏膜屏障的完整性与功能[7];诱导氧化应激反应,引发线粒体结构与功能损伤[8-9];通过激活丝裂原活化蛋白激酶(MAPK)、磷脂酰肌醇3-激酶(PI3K)/蛋白激酶B(AKT)/哺乳动物雷帕霉素靶蛋白(mTOR)及Toll样受体4(TLR4)/核因子-κB(NF-κB)等信号通路,调控细胞凋亡、诱发过度炎症反应并导致自噬功能紊乱[3,10]。上述毒性效应对畜禽免疫系统可产生抑制或异常激活的双重调控作用[11],最终导致动物出现厌食、呕吐、生长发育迟缓及生产性能下降等症状,给畜禽养殖业造成显著的经济损失。鸡胚阶段是肠道发育与功能建立的关键时期,对外源性毒素干扰高度敏感[12]。DON可能通过污染种蛋或孵化环境等途径,直接或间接影响鸡胚的正常发育。然而,DON对鸡胚肠道早期发育的损伤作用及其机制尚未被充分阐明,而这一问题的解析对于理解DON在畜禽整个养殖周期中的健康风险具有重要意义。
目前,针对DON污染的防控策略主要涵盖物理脱毒、化学降解、生物转化及抗氧化营养干预四大类。其中,物理脱毒法(如吸附法、热处理法、辐射处理法等)存在脱毒效果有限或处理条件苛刻等弊端[13];化学降解法借助强氧化剂可实现较高的DON降解效率,但易产生化学残留且可能破坏谷物营养成分[14];生物转化法利用特定微生物菌株或其分泌的降解酶对DON进行转化,因具有高效、环保等优势展现出广阔应用前景,但当前存在生产成本较高的瓶颈问题[15-16];抗氧化营养干预法通过在饲粮中添加硒、氯喹等抗氧化剂,增强畜禽机体的内源性抗氧化防御能力,从而缓解DON诱导的氧化损伤,已成为一项重要的营养干预防控手段[17-18]
亚硒酸钠(Na2SeO3)作为一种稳定且生物可利用的无机硒化合物,在畜禽养殖中具有重要的应用潜力[19-20]。硒是机体必需的微量元素,通过构成谷胱甘肽过氧化物酶(GPx)的关键组分,发挥清除自由基、抑制脂质过氧化的核心抗氧化作用;同时,它还能调节免疫细胞活性与细胞因子分泌,并通过抑制NF-κB等信号通路缓解肠道炎症[21]。Na2SeO3中的硒以离子形态存在,具有良好的溶解性与生物可及性,能够通过参与硒蛋白合成等途径,有效调节机体的抗氧化与免疫过程[22]。在提高动物生长性能、增强机体免疫力与抗氧化能力、优化肠道健康等方面,Na2SeO3已表现出明确的效果[23-24]。尤为重要的是,Na2SeO3的作用机制与DON的毒性机理高度相关。DON可通过诱发线粒体功能障碍,导致活性氧(ROS)过量积累,破坏氧化还原平衡,进而引发氧化应激、炎症反应及细胞损伤[6,25];而抑制氧化应激正是缓解DON毒性的关键环节[26-27]。据此推测,Na2SeO3可能凭借其硒元素的抗氧化与抗炎功能,调节相关信号通路,从而缓解DON诱导的氧化损伤与肠道屏障破坏。然而,目前关于Na2SeO3防控DON毒性的具体作用机制研究仍较为有限。因此,本试验选用海兰褐鸡胚作为试验模型,通过尿囊腔注射方式给予DON及Na2SeO3,旨在探讨Na2SeO3对DON诱导的鸡胚肠道损伤的影响及其作用机制,以期为揭示DON对畜禽肠道的损害机制及Na2SeO3的科学应用提供试验依据。

1 材料与方法

1.1 试验材料

DON(纯度≥99%)购自青岛普瑞邦生物工程有限公司;Na2SeO3(纯度为97%)购自天津市风船化学试剂科技有限公司。

1.2 试验方法

本试验方案已经内蒙古科技大学包头师范学院实验动物伦理委员会审核批准(批准号:AEWC-BTTCSTXY-2025-005)。试验所用胚蛋为海兰褐无特定病原体(SPF)种蛋,购自青岛盛东方种鸡场,蛋重(55±3) g。基础孵化条件:温度(37.8±0.2) ℃、相对湿度60%~65%,每2 h自动翻蛋1次。

1.2.1 Na2SeO3对鸡胚的毒性作用

通过尿囊腔给9胚龄胚蛋无菌注射不同剂量Na2SeO3(按照每50 g蛋重给予0、5、10、20、60、100、120、160、200、240、280、300 μg Na2SeO3,各剂量的Na2SeO3均溶于100 μL无菌超纯水),每个剂量注射20枚胚蛋,注射后继续孵化鸡胚,观察其存活情况并记录死亡数,计算死亡率。用寇氏法计算半数致死量(LD50),计算公式为:
lgLD50= ${\sum }_{i-1}^{n-1}\frac{({X}_{i}+{X}_{i+1})({P}_{i+1}-{P}_{i})}{2}$
式中:Xi为第i组剂量的对数值;Xi+1为第i+1组剂量的对数值;Pi为第i组动物的死亡率;Pi+1为第i+1组动物的死亡率;n为试验组的总数。

1.2.2 Na2SeO3对鸡胚肠上皮细胞(IECs)的影响

鸡胚IECs的分离、纯化、培养方法,以及DON剂量的选择,均参考文献[28]提供的方法。取孵化至15胚龄的鸡胚,经75%乙醇表面消毒后,于无菌条件下取出鸡胚,断颈处死后剖取肠道组织,以预冷磷酸盐缓冲液(PBS)反复洗涤3次,仔细剥离肠系膜后将肠道组织剪成约1 mm3的小块,转移至离心管中,加入等体积的2 mg/mL胶原酶Ⅰ和2 mg/mL透明质酸酶,置于37 ℃恒温振荡器中低速振荡消化1 h。消化结束后充分吹打混匀细胞,200目细胞筛过滤,收集滤液,4 ℃、108×g离心10 min,弃去上清液,以含10%胎牛血清(FBS)的DMEM/F12完全培养基重悬细胞沉淀,接种于培养瓶中,于37 ℃、5% CO2培养箱中培养1 h,利用成纤维细胞较IECs贴壁速度快的特性进行差速贴壁纯化。纯化后收集培养瓶内悬浮细胞,108×g离心10 min,弃上清,以含2.5% FBS的DMEM/F12培养基重悬并调整细胞密度至1.5×105个/mL,按每孔100 μL接种于96孔板中央区域,37 ℃、5% CO2培养箱中培养24 h。待细胞贴壁后,分别加入10 μL含2.5% FBS的DMEM/F12培养基(对照组)、5 μmol/L Na2SeO3(Na2SeO3组)、2 μg/mL DON(DON组)及2 μg/mL DON+5 μmol/L Na2SeO3(DON+Na2SeO3组),继续孵育24 h。处理结束后,吸弃原培养基,以DMEM/F12培养基洗涤细胞2次,加入含10% FBS的DMEM/F12培养基及10 μL CCK-8溶液,继续培养2 h后,于倒置显微镜下观察细胞形态学变化,采用酶标仪测定各孔在450 nm波长处的吸光度(OD450)值,以评价IECs的增殖活力。
采用实时荧光定量PCR(qRT-PCR)法检测鸡胚IECs中自噬相关基因mTOR、泛素结合蛋白p62(SQSTM1)及微管相关蛋白轻链3(LC3)的表达情况。使用相应的酶联免疫吸附测定(ELISA)试剂盒(南京建成生物工程研究所)测定鸡胚IECs中丙二醛(MDA)、过氧化氢(H2O2)含量及总抗氧化能力(T-AOC)。采用流式细胞术检测鸡胚IECs内活性氧ROS水平:以10 μmol/L DCFH-DA荧光探针避光染色后,使用BD FACSCanto Ⅱ流式细胞仪进行检测,每样本收集10 000个细胞。

1.2.3 Na2SeO3对鸡胚肠道的影响

将9胚龄的鸡胚随机分为对照组(按照每50 g蛋重给予100 μL无菌超纯水)、Na2SeO3组(按照每50 g蛋重给予0.43 μg Na2SeO3)、DON组(按照每50 g蛋重给予10 μg DON)和DON+Na2SeO3组(按照每50 g蛋重给予10 μg DON+0.43 μg Na2SeO3),每组5个重复,每个重复20枚蛋。DON与Na2SeO3的剂量选择均基于实验室前期的试验结果[28-29],将DON和Na2SeO3溶于100 μL无菌超纯水,无菌注射至尿囊腔,继续孵化至21胚龄出壳。
于出壳当日(21胚龄),每组随机取12枚胚蛋,雏鸡出壳后称量活重及肠道鲜重,计算肠道指数[肠道指数(%)=(肠道鲜重/雏鸡活重)×100];颈静脉采血1 mL(肝素钠抗凝),825×g离心15 min,取血浆-80 ℃保存待测;取十二指肠中段1 cm,4 ℃生理盐水冲洗后分成2份:第1份用2.5%戊二醛固定4 h,1%锇酸后固定,Epon-812包埋,制备超薄切片(70 nm),铀-铅双重染色后,于透射电镜下观察线粒体超微结构;第2份用液氮速冻后-80 ℃保存,用于自噬相关基因mTORSQSTM1、LC3表达(qRT-PCR法)及MDA、H2O2含量与T-AOC测定(ELISA试剂盒,南京建成生物工程研究所)。

1.3 qRT-PCR法测定自噬相关基因mRNA的相对表达量

采用TRIzol法分别提取IECs及肠道组织总RNA,使用PrimeScript RT试剂盒(TaKaRa)反转录为cDNA。qRT-PCR采用SYBR Green法,于ABI 7500 PCR仪(Thermo Fisher Scientific,美国)上进行,引物序列见表1。反应体系(20 μL)包含:cDNA模板2 μL,上、下游引物各0.4 μL,SYBR Green预混液10 μL,ROX参比染料0.4 μL,灭菌蒸馏水6.8 μL。扩增程序为:95 ℃预变性30 s;95 ℃变性5 s,60 ℃退火与延伸34 s,共40个循环。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表1 qRT-PCR引物序列

Table 1 qRT-PCR primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
哺乳动物雷帕霉素靶蛋白
mTOR
F:CTTGGGTTTGCTTTCTGTGG
R:TAATGTCCTGCTGGATACTTGG
197
泛素结合蛋白p62
SQSTM1
F:CTTACGTGCAGGACGGAGTTT
R:CCTTGTGGATGCCTTTACCC
222
微管相关蛋白轻链3
LC3
F:TCCGAGATCAGCATCCAACT
R:CGCCTGATGATTTTGATTAGC
139
β-肌动蛋白
β-actin
F:TGATATTGCTGCGCTCGTTG
R:ATACCTCTTTTGCTCTGGGCTT
183

1.4 数据统计与分析

试验数据采用SPSS 22.0统计软件进行分析。采用ANOVA程序进行单因素方差分析(one-way ANOVA),并采用Duncan氏多重比较法进行组间比较。结果以“平均值±标准误”表示。以P<0.01表示差异极显著,P<0.05表示差异显著,P>0.05表示差异不显著。

2 结果与分析

2.1 Na2SeO3对鸡胚的毒性作用

图1可知,在低剂量(0~20 μg)下,Na2SeO3对鸡胚毒性很低(死亡率≤10%);当每50 g蛋重给予的剂量达到60 μg时,死亡率达到50%,且随着剂量的继续增大,死亡率呈现剂量效应,毒性不断增强。经寇氏法计算,Na2SeO3经鸡胚尿囊腔注射的LD50为2.255 μg/g,95%可信区间为1.784~2.773 μg/g。
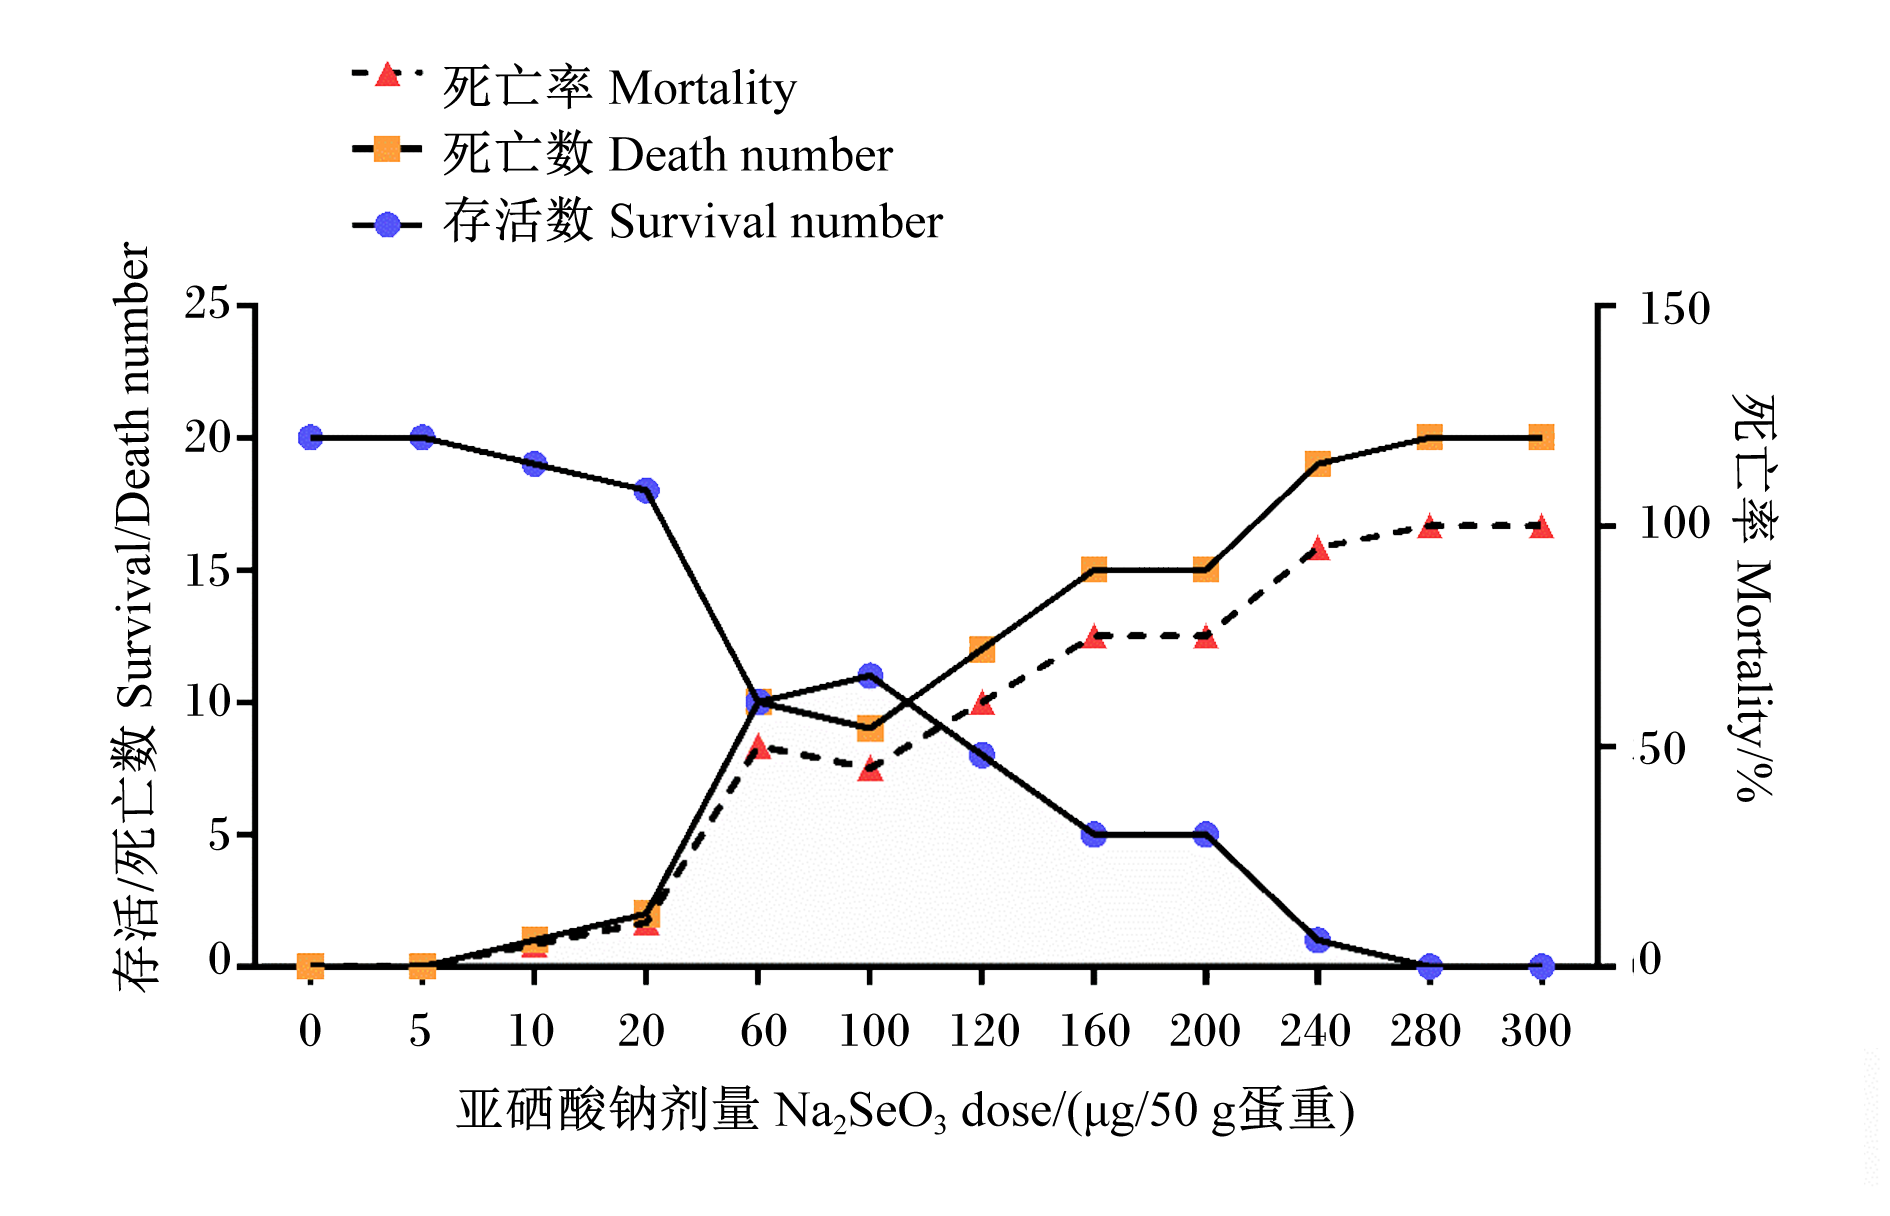
图1 Na2SeO3对鸡胚的急性毒性试验结果

Fig.1 Results of Na2SeO3 acute toxicity test on chicken embryos (n=20)

2.2 Na2SeO3对鸡胚IECs增殖活力的影响

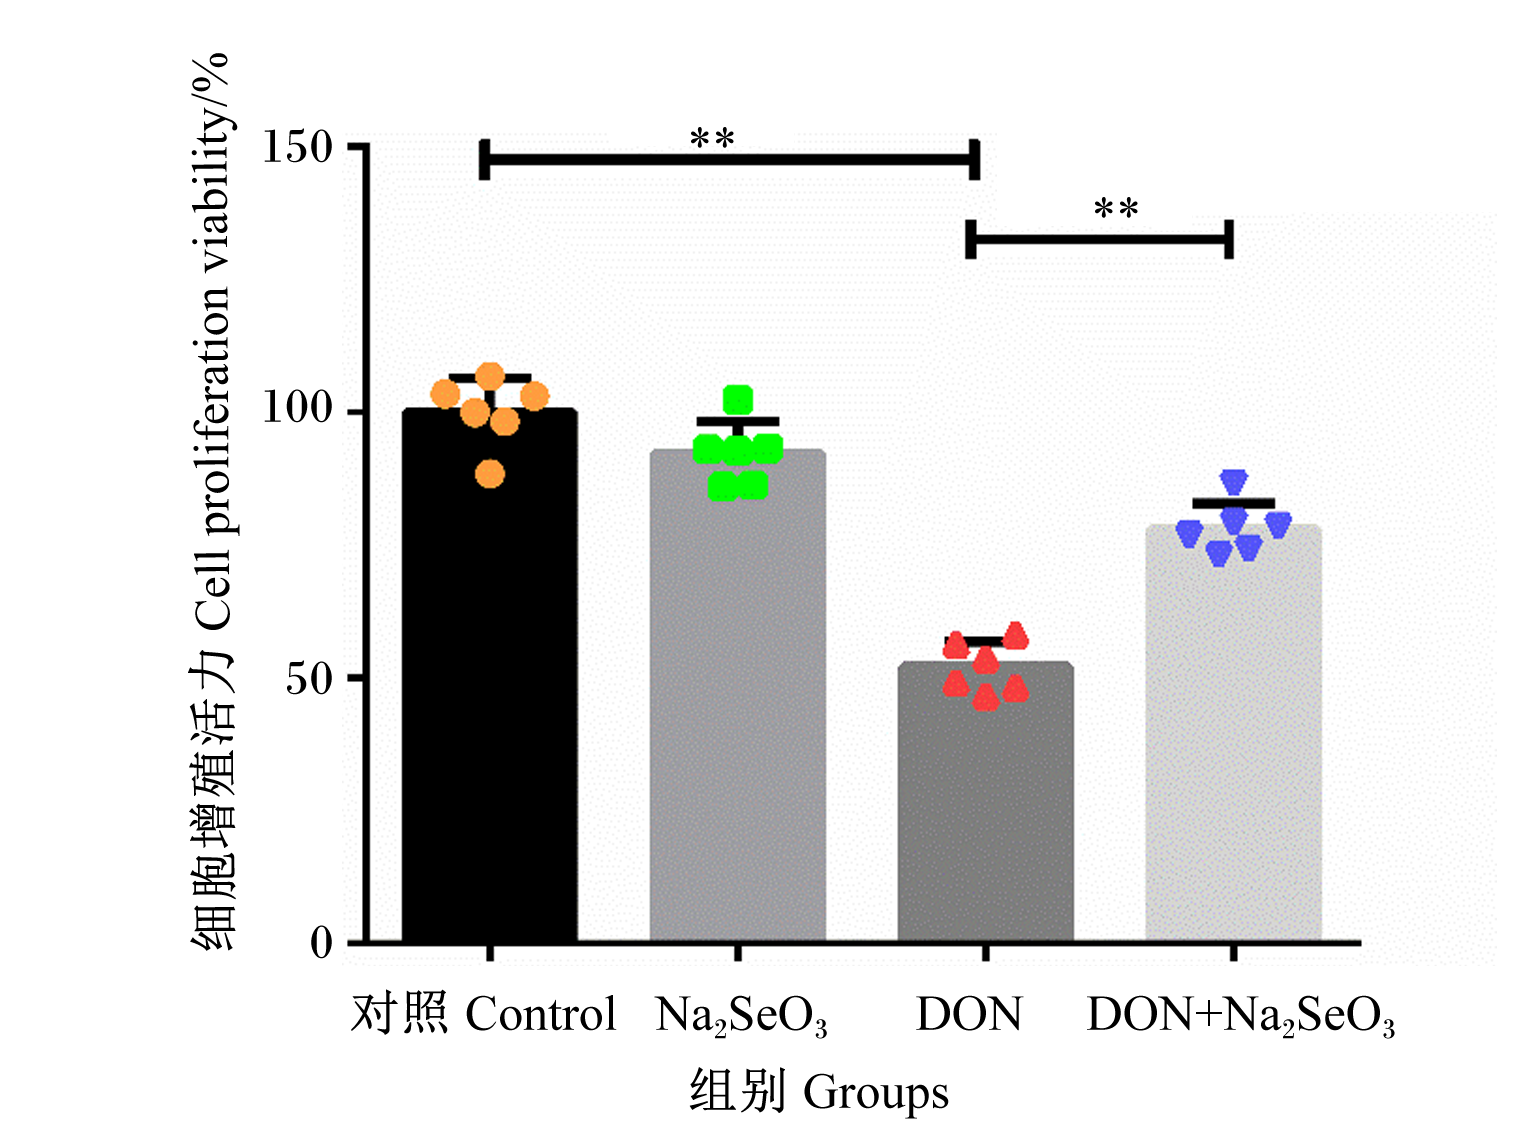
图2可知,与对照组相比,DON组的细胞增殖活力极显著下降(P<0.01);而与DON组相比,DON+Na2SeO3组的细胞增殖活力极显著上升(P<0.01)。图3显示,对照组细胞生长正常,呈典型铺路石状排列;DON组贴壁细胞数量减少,细胞间距增大,形态萎缩,并可见分裂丝状结构及大小不等的空泡;通过Na2SeO3处理后,上述细胞损伤明显缓解。
图2 细胞增殖活力检测结果

*:差异显著(P<0.05);**:差异极显著(P<0.01);ns:差异不显著(P>0.05)。下图同。

Fig.2 Detection results of cell proliferation viability (n=6)

*: significant difference (P<0.05); **: extremely significant difference (P<0.01); ns: no significant difference (P>0.05). The same as below.

图3 细胞形态变化

Fig.3 Changes in cell morphology

2.3 Na2SeO3对鸡胚IECs自噬相关基因表达的影响

图4可知,与对照组相比,DON组mTORSQSTM1的mRNA相对表达量极显著升高(P<0.01),LC3的mRNA相对表达量极显著降低(P<0.01);与DON组比较,DON+Na2SeO3mTOR的mRNA相对表达量显著降低(P<0.05),SQSTM1的mRNA相对表达量极显著降低(P<0.01),LC3的mRNA相对表达量显著升高(P<0.05)。上述结果表明,DON通过抑制自噬并激活mTOR信号通路诱导细胞损伤,而Na2SeO3通过逆转这些效应发挥保护作用。
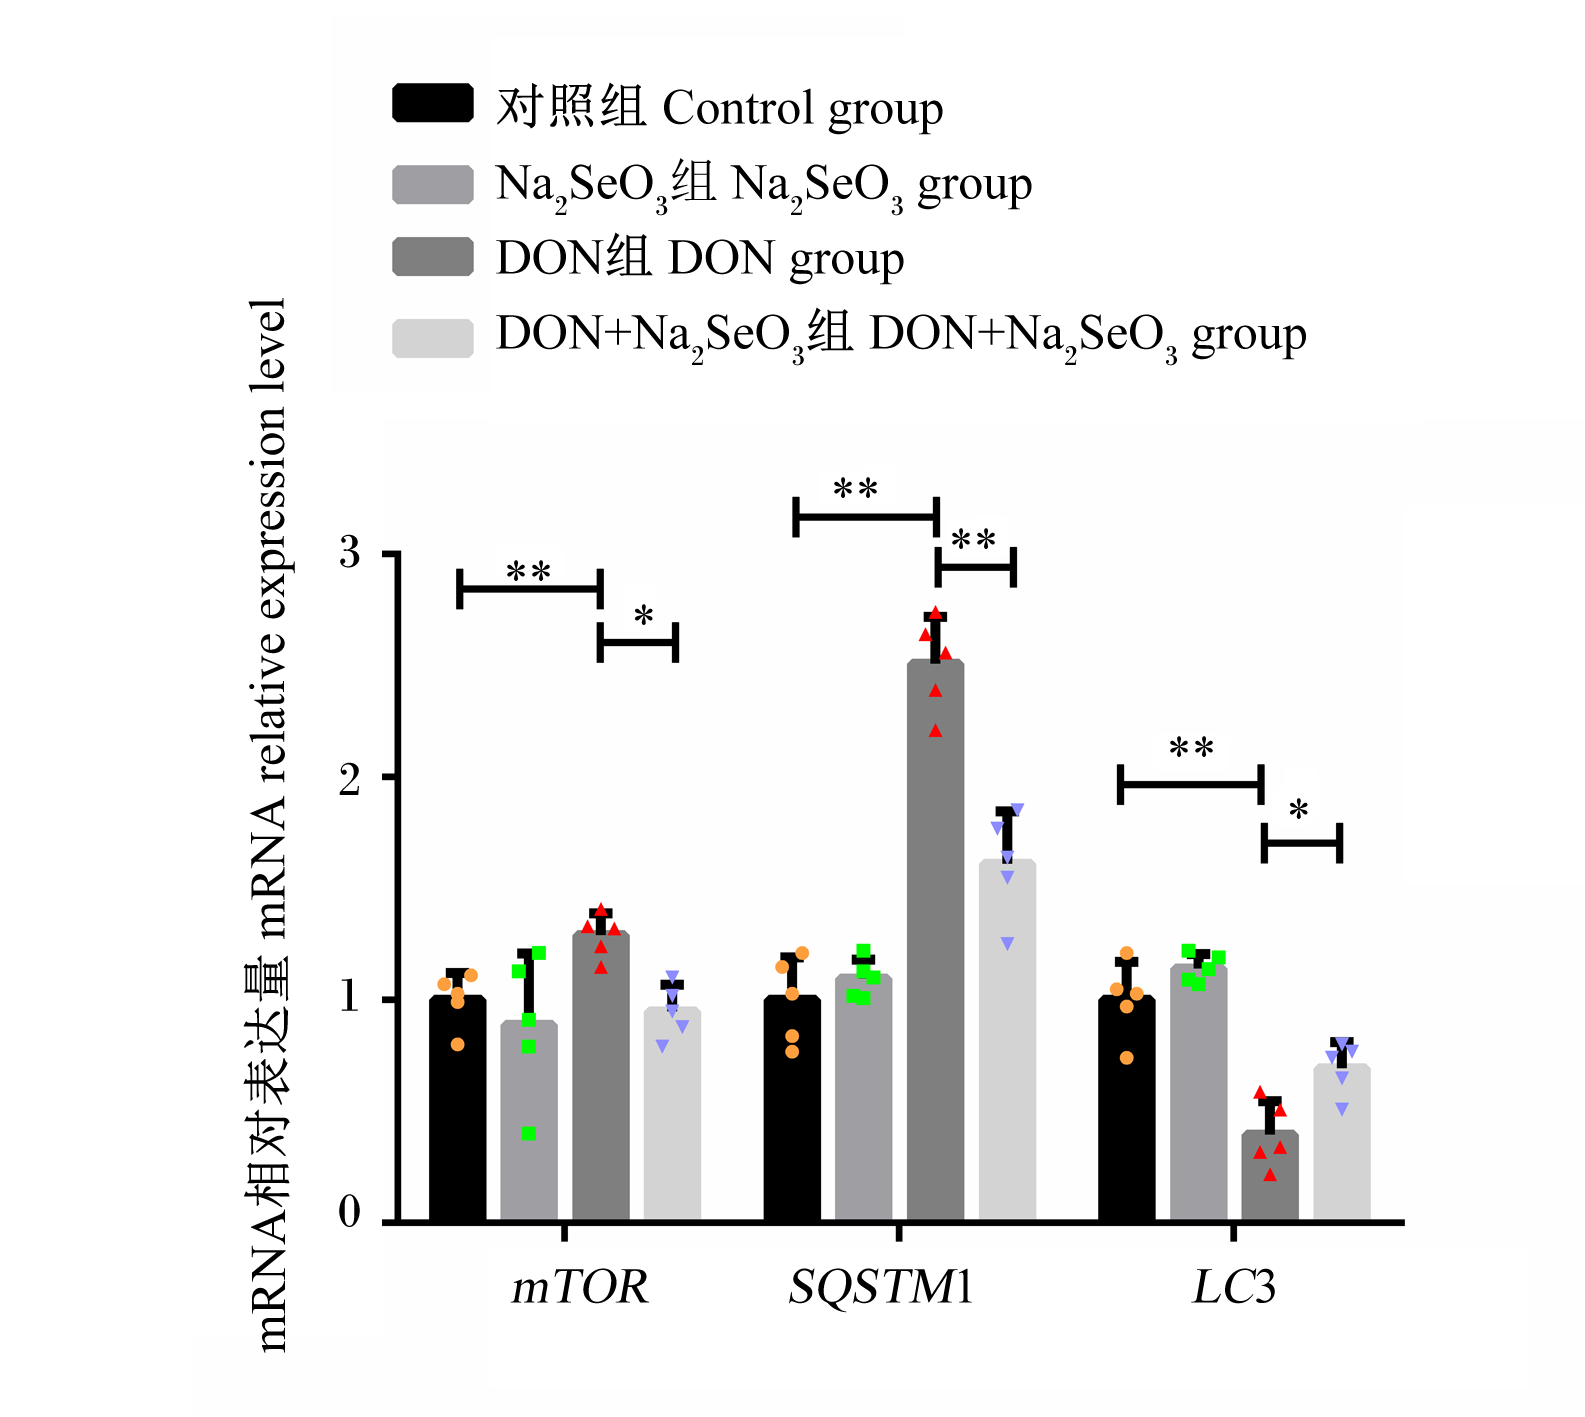
图4 细胞中自噬相关基因的mRNA相对表达量检测结果

mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin ;SQSTM1:泛素结合蛋白p62 ubiquitin-binding protein p62;LC3:微管相关蛋白轻链3 microtubule-associated protein light chain 3。图9同 the same as Fig.9

Fig.4 Detection results of mRNA relative expression levels of autophagy-related genes in cells (n=5)

2.4 Na2SeO3对鸡胚IECs抗氧化能力的影响

图5可知,与对照组相比,DON组MDA含量显著升高(P<0.05),H2O2含量极显著升高(P<0.01),T-AOC极显著降低(P<0.01);与DON组相比,DON+Na2SeO3组MDA含量极显著降低(P<0.01),H2O2含量显著降低(P<0.05),T-AOC显著升高(P<0.05)。上述结果表明,DON通过加剧氧化应激诱导细胞损伤,而Na2SeO3能显著增强细胞的抗氧化能力,有效减轻DON诱导的氧化损伤。
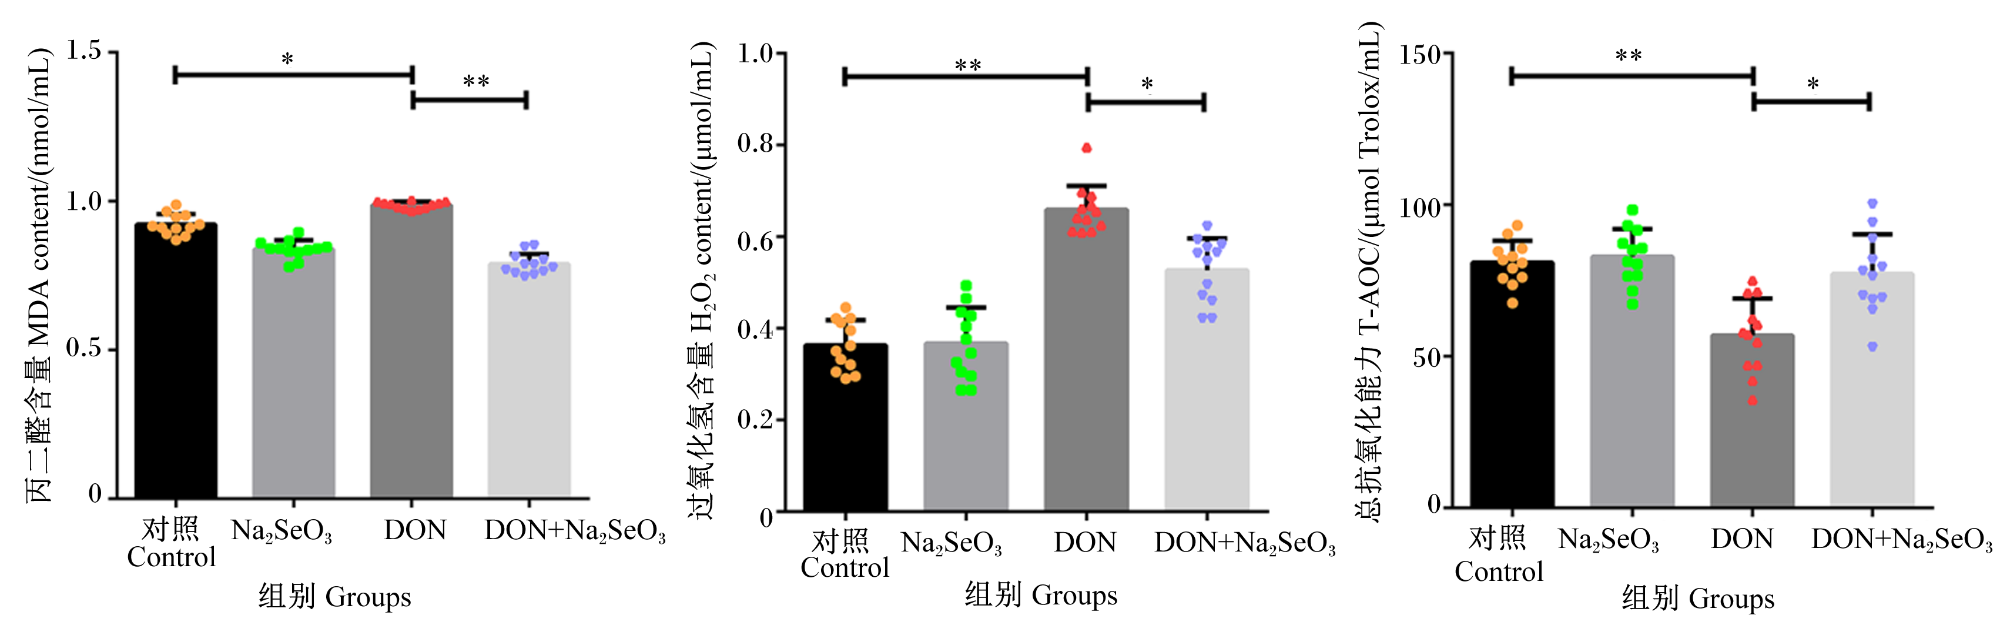
图5 细胞中MDA、H2O2含量和T-AOC检测结果

Fig.5 Detection results of MDA, H2O2 contents and T-AOC in cells (n=12)

2.5 Na2SeO3对鸡胚IECs内ROS生成的影响

图6可知,与对照组比较,DON组ROS水平显著升高(P<0.05);与DON组比较,DON+Na2SeO3组ROS水平显著降低(P<0.05)。
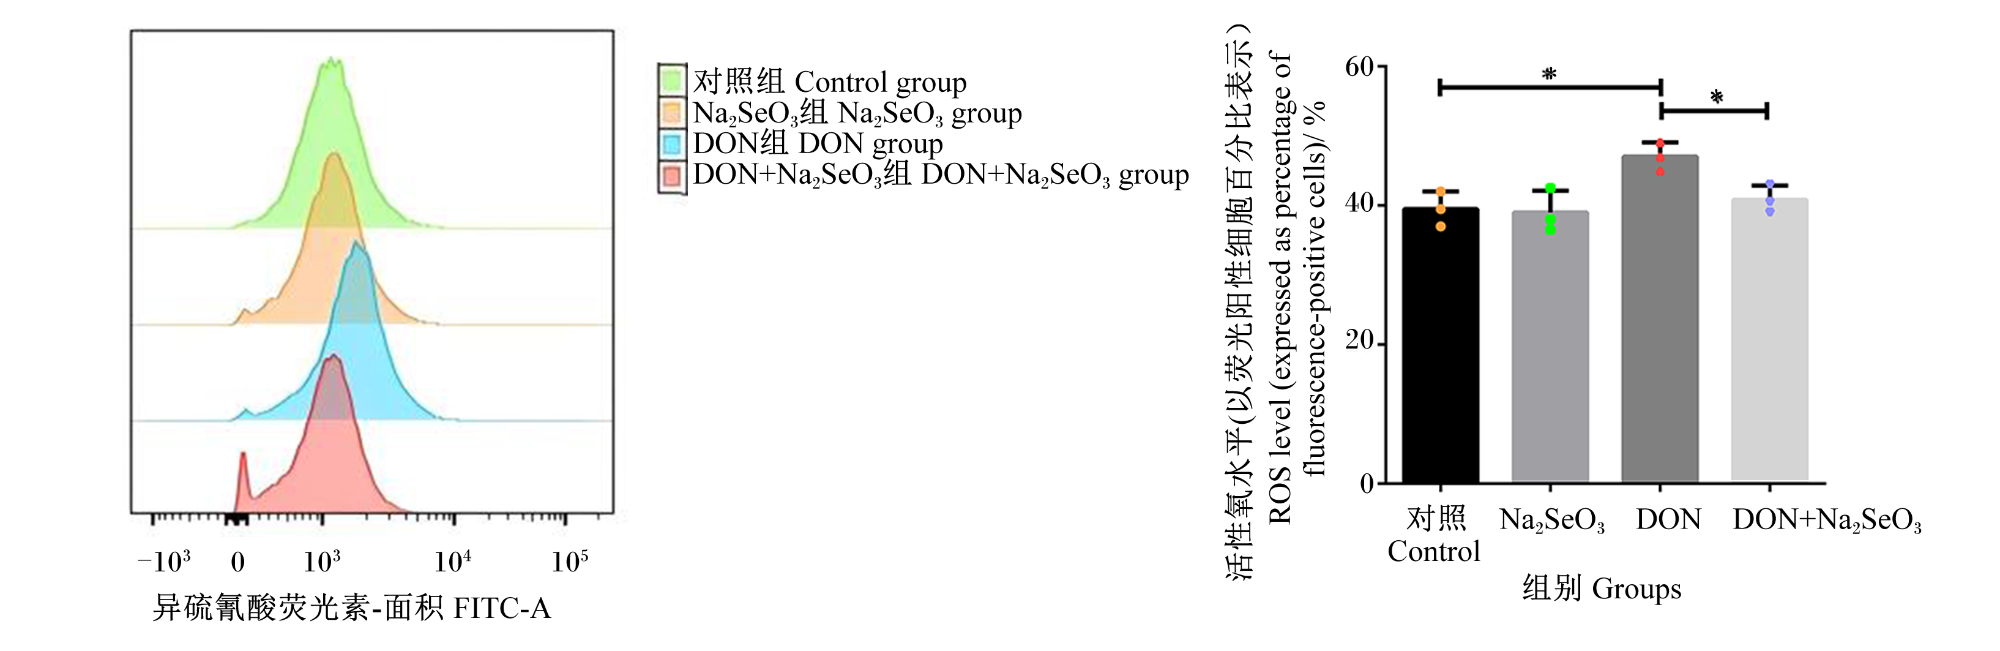
图6 细胞内ROS水平检测结果

Fig.6 Detection results of ROS level in cells (n=3)

2.6 Na2SeO3对雏鸡肠道发育的影响

图7可知,与对照组相比,DON组雏鸡活重差异不显著(P>0.05),但肠道鲜重和肠道指数均显著降低(P<0.05);与DON组相比,DON+Na2SeO3组肠道鲜重和肠道指数均有不同程度的升高(P>0.05)。上述结果表明,DON可能通过抑制肠道发育进而影响雏鸡生长,而Na2SeO3有助于促进肠道功能恢复。
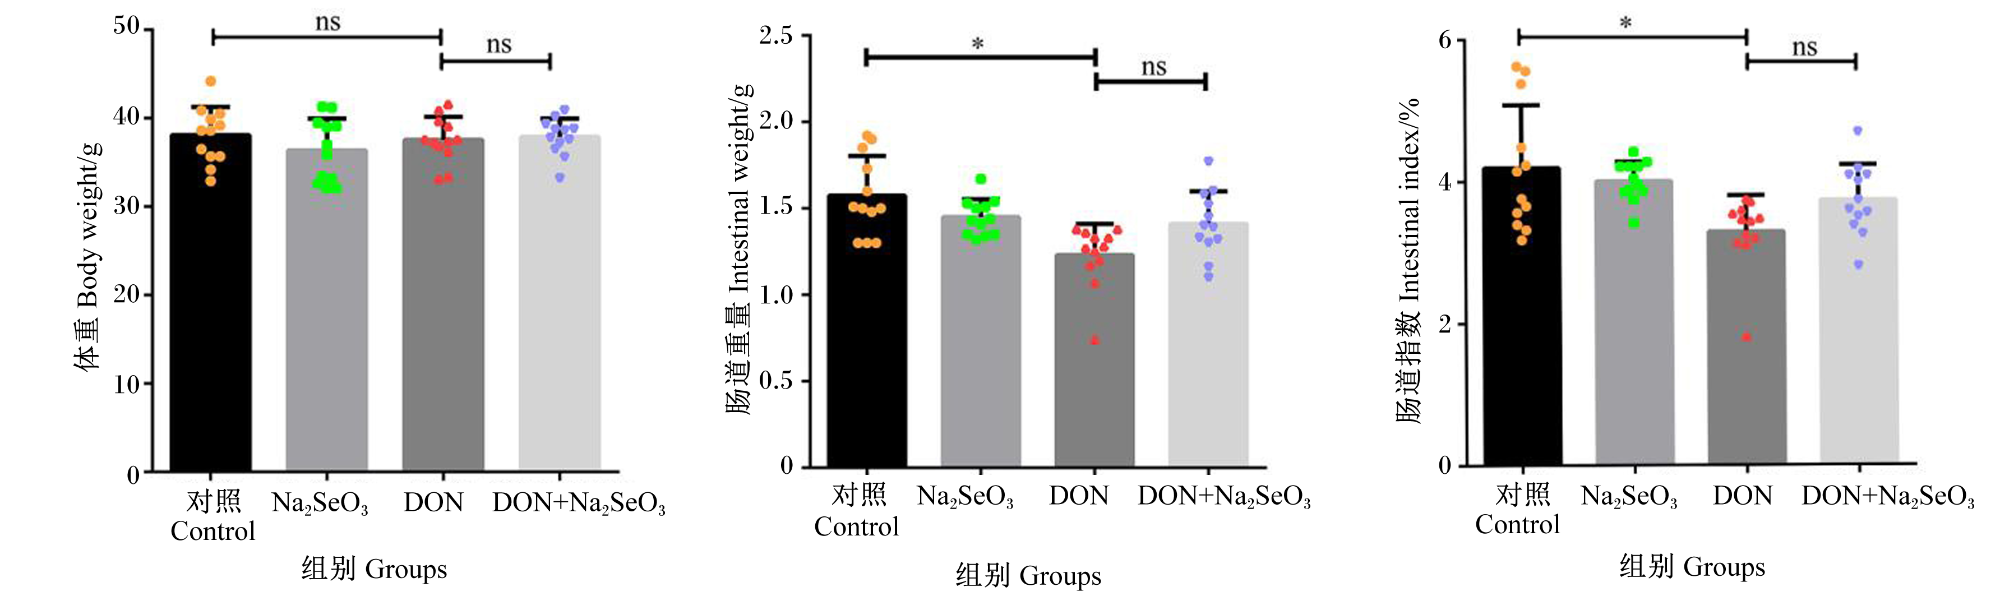
图7 雏鸡体重、肠道重量、肠道指数检测结果

Fig.7 Detection results of body weight, intestinal weight and intestinal index of chicks (n=12)

2.7 Na2SeO3对雏鸡抗氧化能力的影响

图8可知,与对照组相比,DON组血浆中MDA含量显著升高(P<0.05),H2O2含量极显著升高(P<0.01),T-AOC显著降低(P<0.05);与DON组比较,DON+Na2SeO3组血浆中MDA含量显著降低(P<0.05),H2O2含量极显著降低(P<0.01),T-AOC显著升高(P<0.05)。上述结果表明,DON通过加剧氧化应激诱导雏鸡体内氧化损伤,而Na2SeO3可逆转该效应,从而发挥保护作用。
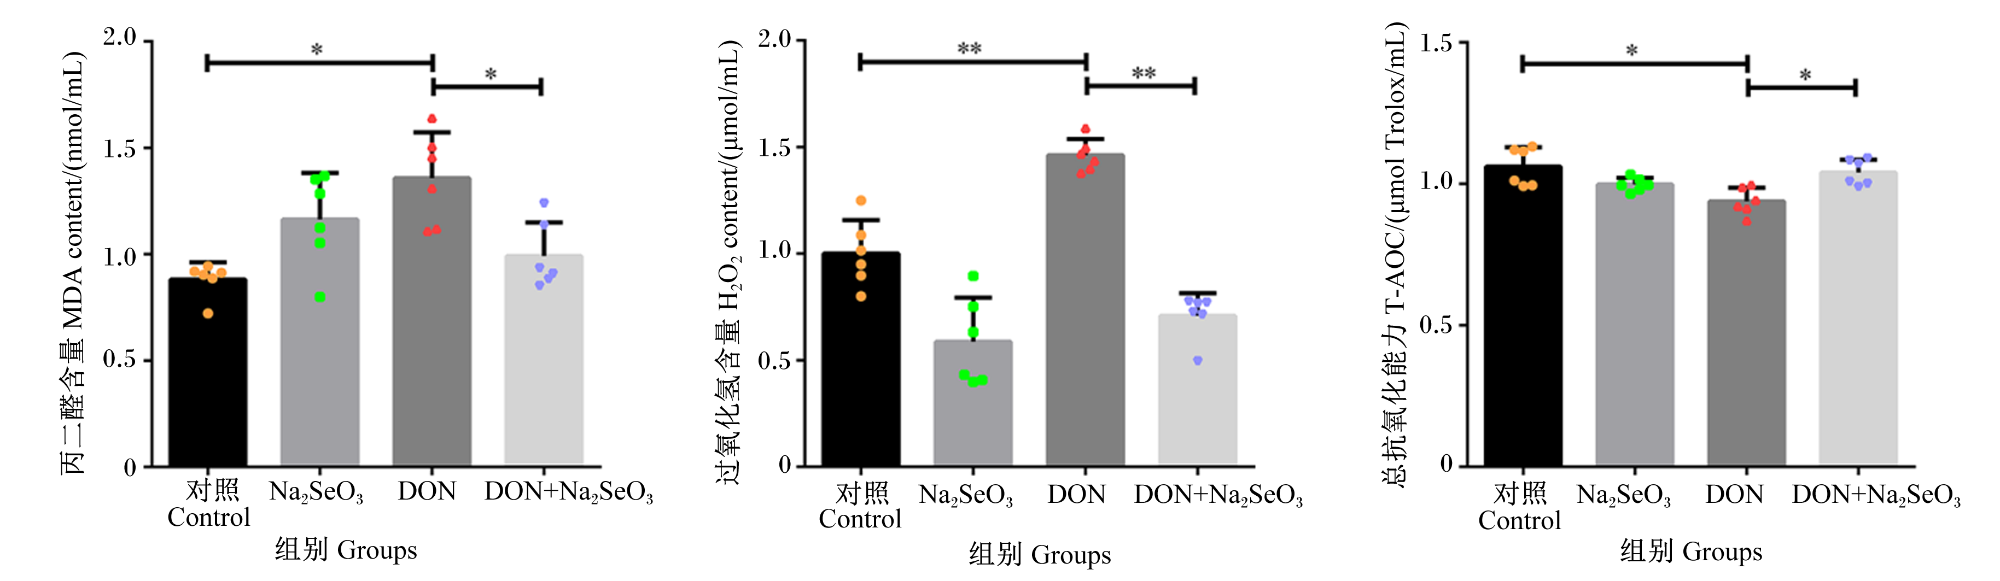
图8 雏鸡血浆中MDA、H2O2含量和T-AOC检测结果

Fig.8 Detection results of MDA, H2O2 contents and T-AOC in plasma of chicks (n=6)

2.8 Na2SeO3对雏鸡肠道中自噬相关基因表达的影响

图9可知,与对照组相比,DON组肠道中mTOR的mRNA相对表达量极显著升高(P<0.01),LC3的mRNA相对表达量极显著降低(P<0.01);与DON组比较,DON+Na2SeO3mTOR的mRNA相对表达量显著降低(P<0.05),LC3的mRNA相对表达量显著升高(P<0.05)。上述结果表明,DON通过抑制肠道自噬并激活mTOR信号通路诱导雏鸡肠道损伤,而Na2SeO3可通过逆转这些效应发挥对雏鸡肠道的保护作用,从而缓解DON诱导的肠道毒性。
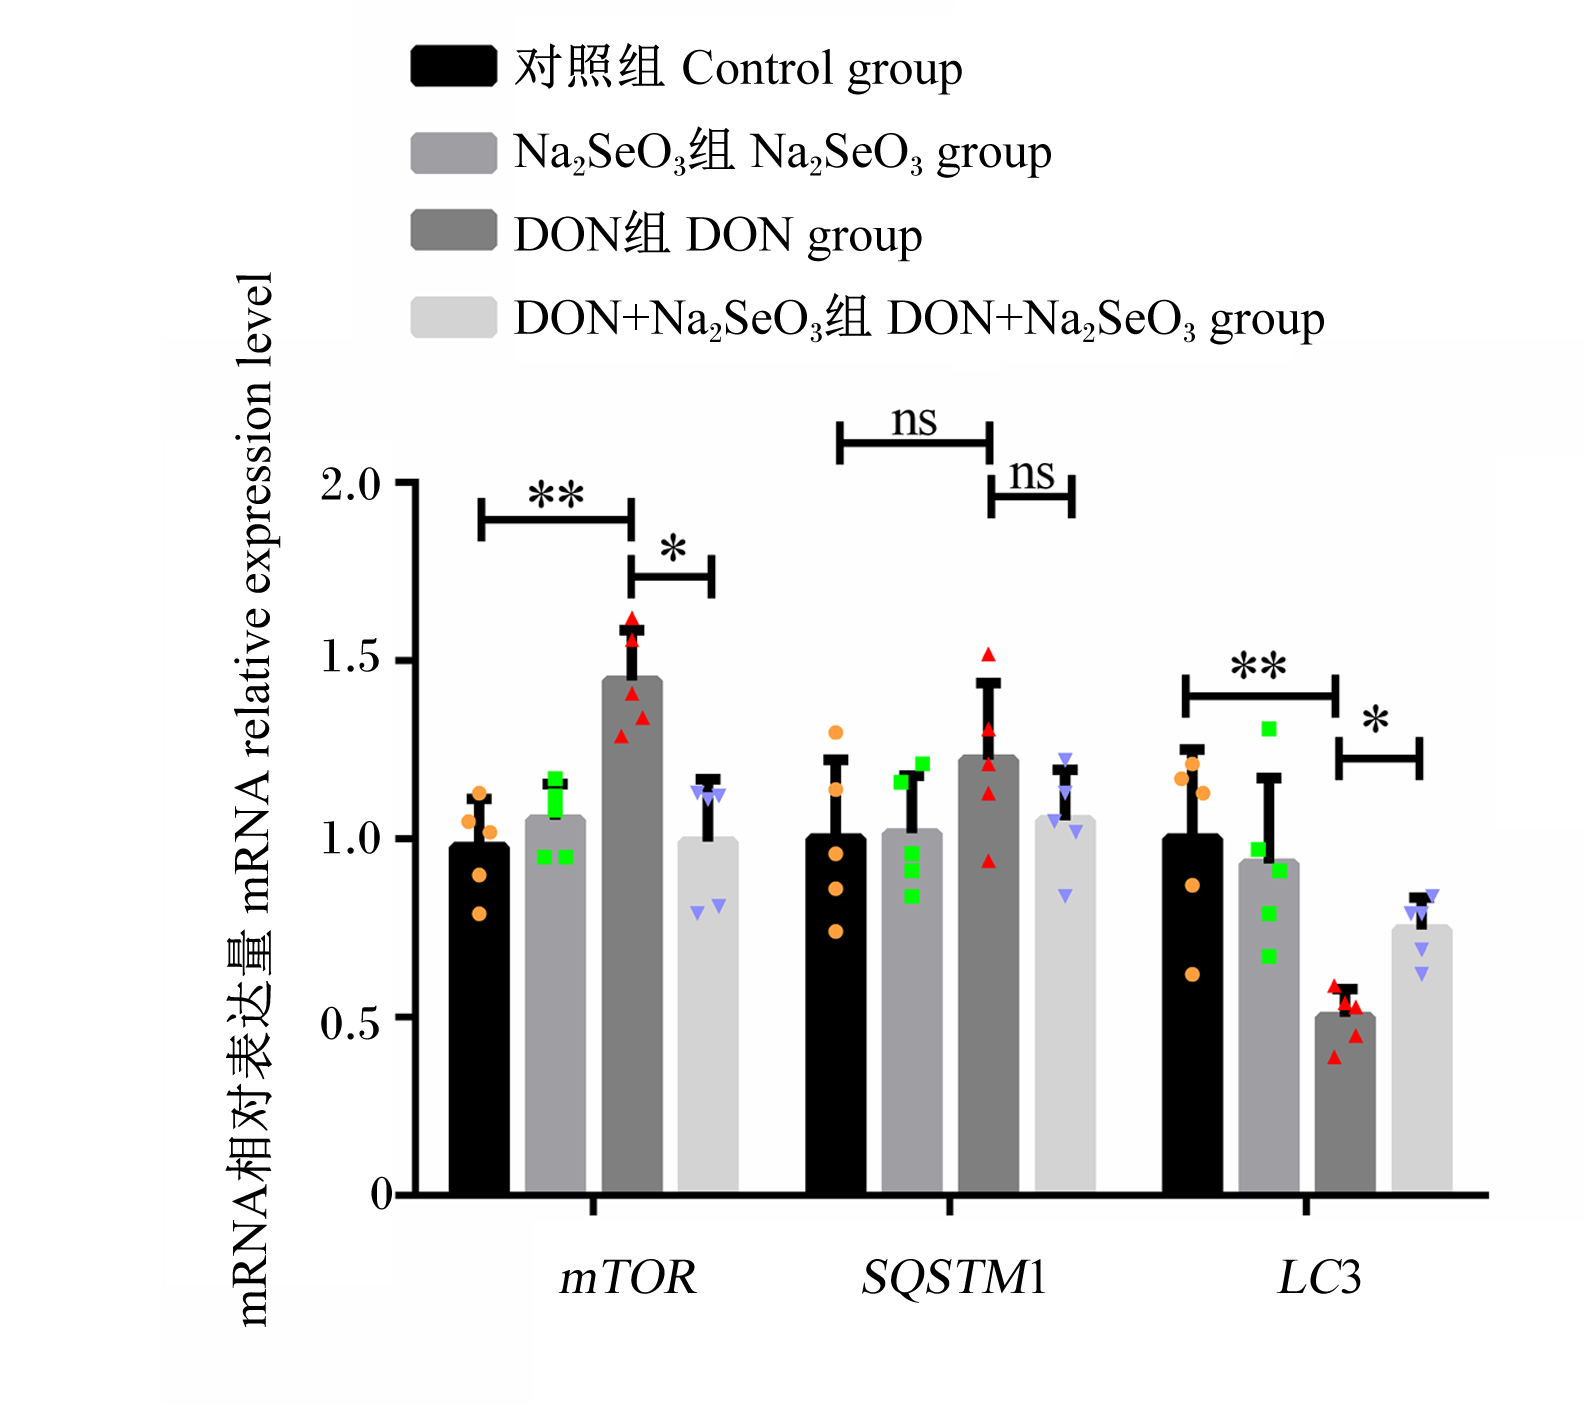
图9 雏鸡肠道中自噬相关基因mRNA相对表达量检测结果

Fig.9 Detection results of mRNA relative expression levels of autophagy-related genes in intestine of chicks (n=5)

2.9 Na2SeO3对雏鸡肠道组织中线粒体的影响

图10可知,透射电镜下观察到正常线粒体形态为线状或球状,长度为0.5~1.5 μm,可以清晰看到内外两层膜, DON则导致线粒体损伤,可见线粒体嵴肿胀、破裂,线粒体自噬明显,而Na2SeO3减轻了上述损伤表现。这表明,DON通过破坏线粒体结构(嵴肿胀、破裂)并诱发自噬导致线粒体损伤,而Na2SeO3通过减轻这些损伤发挥保护作用。
图10 雏鸡肠道组织中线粒体的变化

Fig.10 Changes of mitochondria in intestinal tissues of chicks

3 讨论

在禽类养殖中,DON可通过污染饲料引发家禽生长抑制、肠道屏障损伤及免疫功能紊乱,严重威胁禽类健康与生产效益[30]。Na2SeO3作为一种无机硒补充剂,在动物生产中广泛应用于改善生长性能、增强抗氧化能力及调节免疫功能,其作用机制主要与其参与硒蛋白合成及氧化还原调控有关[31]。本试验通过鸡胚尿囊腔注射模型,探讨了Na2SeO3对DON诱导的肠道损伤的保护作用及其机制,结果表明,Na2SeO3能有效缓解DON引起的雏鸡肠道鲜重及肠道指数下降,改善肠道组织中线粒体超微结构损伤,其保护作用可能与调控自噬和增强抗氧化能力有关。此外,本试验通过鸡胚急性毒性试验测定了Na2SeO3的LD50,不仅明确了其对鸡胚发育阶段的急性毒性强度,也为本研究中Na2SeO3剂量的安全选择提供了关键依据。
DON对动物肠道的毒性机制涉及多个层面。研究表明,DON可通过抑制蛋白质合成并诱导细胞凋亡直接造成肠道损伤[32],还能破坏肠道屏障功能,增加肠道通透性[7],并通过诱导氧化应激与炎症反应进一步加剧损伤[8]。线粒体作为细胞能量代谢中心,是DON毒性的关键靶点。研究显示,DON会导致猪IECs紧密连接蛋白含量降低,上调自噬因子LC3的表达,诱导线粒体自噬,破坏线粒体质量,引起线粒体肿胀和空泡化,表明肠道毒性与线粒体损伤密切相关[6]。线粒体不仅为肠黏膜增殖和屏障再生供能,也参与调控自噬、分化与凋亡[33]。本试验结果与此一致:DON处理导致雏鸡肠道组织出现线粒体基质肿胀及破裂现象,同时肠道鲜重和肠道指数呈降低趋势,这提示肠道细胞增殖受抑制或凋亡增加,功能受损。而添加Na2SeO3能有效缓解DON对肠道发育的抑制,改善了肠道损伤。此前研究也表明,硒在维护肠道健康方面具有积极作用。例如,在肉鸡饲粮中添加有机硒可显著提高肠道指数、肠道长度和肠绒毛高度,并减轻炎症反应[34]。有机硒还能改善黄曲霉毒素引起的家兔肠绒毛结构破坏和杯状细胞减少[35]。这些结果共同说明,DON通过多途径损害肠道结构与功能,而硒类保护剂(如硒化壳聚糖)可能通过调控线粒体功能、自噬及氧化应激等,有效缓解DON诱导的肠道毒性。
氧化应激是细胞在有害刺激下因ROS过度积累而引发的损伤过程。ROS不仅是氧化损伤的直接介质,也是激发机体抗氧化防御的关键信号[36-37]。这一防御系统遍布全身组织[38],通过合成或摄入抗氧化物质以及上调超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、GPx、过氧化物酶(POD)等抗氧化酶的表达来清除ROS、修复损伤[39],从而维持细胞稳态[40]。研究表明,DON是诱导氧化应激的重要外源毒素,它可通过促进ROS生成导致氧化损伤[10],而ROS的积累又可进一步激活自噬以清除受损组分[41]。在动物模型中,DON暴露会导致猪IECs中ROS水平升高,并伴随炎症与凋亡相关基因表达上调[42]。在牛IECs中,DON同样诱发氧化应激与细胞凋亡,并上调促炎因子白细胞介素-1(IL-1)和白细胞介素-6(IL-6)mRNA的表达;相应的生化指标变化趋势一致,DON处理能增加细胞内的H2O2和MDA含量[43]。硒在缓解DON诱导的氧化损伤中显示出明确的保护作用。例如,硒能通过抑制IECs铁死亡来减轻DON损伤,并显著降低MDA含量[17]。硒蛋氨酸(有机硒)能显著提升DON暴露小鼠体内的SOD和GPx活性,降低ROS水平与MDA含量,并改善肠道形态[44]。对禽类的研究显示,饲粮中添加硒代蛋氨酸能显著提高雏鸡的生长性能及抗氧化能力[35,45]。本试验结果与上述研究结果相符,DON处理显著或极显著提高了细胞内H2O2和MDA含量,极显著降低了T-AOC;而添加Na2SeO3能有效逆转这些变化,显著或极显著降低了细胞内H2O2和MDA含量,显著提升了T-AOC。这表明,尽管不同硒源的代谢与效率存在差异,但它们均可通过提供硒元素,增强机体的抗氧化防御能力,有效拮抗DON诱导的氧化应激,从而发挥细胞保护作用。
研究表明,DON可通过诱导氧化应激激活细胞自噬[8],但过度自噬可能导致细胞死亡[46]。在动物和细胞模型中,DON均表现出显著的毒性效应:在动物模型中,饲喂含DON饲粮的断奶仔猪出现空肠绒毛上皮变性坏死、回肠淋巴细胞增生、脂质过氧化物增加及血清脂多糖含量升高等病理变化[4];在细胞模型中,浓度低至0.5 μmol/L的DON即可显著抑制IPEC-J2细胞的活力[47]。硒在缓解此类毒性中显示出保护潜力,黄周寅[48]报道,硒代蛋氨酸能有效减轻DON对细胞增殖活力的抑制。本试验中Na2SeO3也表现出相似的保护作用。进一步的机制研究表明,硒可通过调节自噬关键标志物发挥作用,LC3与p62是评价自噬活性的重要指标[49]。硒代蛋氨酸能缓解四溴双酚A引起的LC3荧光强度上升[50];刘婉儿等[51]发现,硒可通过PI3K/AKT/mTOR通路调控滋养细胞自噬。本试验结果与上述研究结果一致,Na2SeO3能恢复由DON抑制的自噬水平。这些结果共同提示,硒可能通过调控自噬相关通路,尤其是影响LC3转化与p62积累,缓解DON诱导的细胞损伤。
硒的不同化学形态影响其代谢途径与生物利用效率。本研究使用的Na2SeO3作为无机硒源,其吸收代谢途径不同于硒代蛋氨酸等有机硒[52]。然而,本研究结果及多种硒源的相关研究共同表明,其核心保护机制均源于硒元素参与合成硒蛋白,进而发挥抗氧化与调节信号通路的根本生物学功能[21,31]。此外,虽然本研究为Na2SeO3对DON诱导的鸡胚肠道损伤具有保护作用提供了有力的证据,但仍存在一定的局限性:本研究主要通过肠道鲜重、肠道指数及线粒体超微结构等间接指标,探讨Na2SeO3对肠道屏障的保护效应,尚未直接检测密封蛋白-1(Claudin-1)、闭合蛋白(Occludin)、闭锁小带蛋白-1(ZO-1)等核心紧密连接蛋白的表达变化。因此,Na2SeO3缓解DON诱导的肠道屏障损伤的具体分子机制尚未完全阐明,这也是后续研究中需进一步深入验证与阐明的重点方向。

4 结论

本研究结果表明,DON对鸡胚具有显著的肠道毒性,可抑制肠道发育、损伤线粒体结构,并诱导IECs发生氧化应激与自噬异常。Na2SeO3能有效缓解上述损伤,通过其抗氧化特性清除过量ROS,并调控自噬信号通路,从而在细胞与组织层面改善DON导致的氧化损伤、线粒体功能障碍及自噬紊乱。
[1]
STREIT E, NAEHRER K, RODRIGUES I, et al. Mycotoxin occurrence in feed and feed raw materials worldwide:long-term analysis with special focus on Europe and Asia[J]. Journal of the Science of Food and Agriculture, 2013, 93(12):2892-2899.

DOI

[2]
XU R, KIARIE E G, YIANNIKOURIS A, et al. Nutritional impact of mycotoxins in food animal production and strategies for mitigation[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):69.

DOI PMID

[3]
GU X L, GUO W Y, ZHAO Y J, et al. Deoxynivalenol-induced cytotoxicity and apoptosis in IPEC-J2 cells through the activation of autophagy by inhibiting PI3K-AKT-mTOR signaling pathway[J]. ACS Omega, 2019, 4(19):18478-18486.

DOI PMID

[4]
闫昭明, 李文睿, 刘霜莉, 等. 单端孢霉烯族毒素的致病机理及防治措施研究进展[J]. 动物营养学报, 2020, 32(6):2543-2550.

DOI

YAN Z M, LI W R, LIU S L, et al. Research advances on pathogenic mechanism and control measures of trichothecenes mycotoxin[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2543-2550. (in Chinese)

[5]
SCHELSTRAETE W, DEVREESE M, CROUBELS S. Comparative toxicokinetics of Fusarium mycotoxins in pigs and humans[J]. Food and Chemical Toxicology, 2020, 137:111140.

DOI

[6]
PAYROS D, ALASSANE-KPEMBI I, LAFFITTE J, et al. Dietary exposure to the food contaminant deoxynivalenol triggers colonic breakdown by activating the mitochondrial and the death receptor pathways[J]. Molecular Nutrition & Food Research, 2021, 65(23):e2100191.

[7]
PINTON P, BRAICU C, NOUGAYREDE J P, et al. Deoxynivalenol impairs porcine intestinal barrier function and decreases the protein expression of claudin-4 through a mitogen-activated protein kinase-dependent mechanism[J]. The Journal of Nutrition, 2010, 140(11):1956-1962.

DOI

[8]
WU Q H, WANG X, YANG W, et al. Oxidative stress-mediated cytotoxicity and metabolism of T-2 toxin and deoxynivalenol in animals and humans:an update[J]. Archives of Toxicology, 2014, 88(7):1309-1326.

DOI

[9]
REN Z H, HE H Y, ZUO Z C, et al. ROS:trichothecenes’ handy weapon?[J]. Food and Chemical Toxicology, 2020, 142:111438.

DOI

[10]
PESTKA J J. Deoxynivalenol:toxicity,mechanisms and animal health risks[J]. Animal Feed Science and Technology, 2007, 137(3/4):283-298.

DOI

[11]
ZHANG J S, MA K Y, WANG H L. Cyclophosphamide suppresses thioredoxin reductase in bladder tissue and its adaptive response via inductions of thioredoxin reductase and glutathione peroxidase[J]. Chemico-Biological Interactions, 2006, 162(1):24-30.

DOI PMID

[12]
HOU L L, YUAN H, LIU Y, et al. Effect of deoxynivalenol on inflammatory injury on the glandular stomach in chick embryos[J]. Poultry Science, 2023, 102(11):102870.

DOI

[13]
ZHANG Q, ZHANG Y L, LIU S S, et al. Adsorption of deoxynivalenol by pillared montmorillonite[J]. Food Chemistry, 2021, 343:128391.

DOI

[14]
MOAZAMI F E, JINAP S, MOUSA W, et al. Effect of food additives on deoxynivalenol (DON) reduction and quality attributes in steamed-and-fried instant noodles[J]. Cereal Chemistry, 2014, 91(1):88-94.

DOI

[15]
WANG G, WANG Y X, MAN H Z, et al. Metabolomics-guided analysis reveals a two-step epimerization of deoxynivalenol catalyzed by the bacterial consortium IFSN-C1[J]. Applied Microbiology and Biotechnology, 2020, 104(13):6045-6056.

DOI PMID

[16]
孙晶, 赵程程, 杜稳, 等. 脱氧雪腐镰刀菌烯醇解毒酶研究进展[J]. 粮油食品科技, 2024, 32(2):121-126.

SUN J, ZHAO C C, DU W, et al. Research advances in enzymatic detoxification of deoxynivalenol[J]. Science and Technology of Cereals,Oils and Foods, 2024, 32(2):121-126. (in Chinese)

[17]
范士杰. GPX4介导硒缓解呕吐毒素诱发肠道铁死亡损伤的机制研究[D].博士学位论文. 北京: 中国农业科学院, 2024.

FAN S J. Studies on the effect of GPX4-mediated selenium mitigating intestinal ferroptosis damage induced by deoxynivalenol[D].Ph.D. Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2024. (in Chinese)

[18]
廖思梦, 齐鸣, 颜佳梦, 等. 氯喹抑制自噬对呕吐毒素诱导的仔猪生长性能和血液指标变化的影响[J]. 动物营养学报, 2019, 31(10):4817-4824.

DOI

LIAO S M, QI M, YAN J M, et al. Effects of chloroquine inhibiting autophagy on growth performance and blood indexes change of piglets induced by deoxynivalenol[J]. Chinese Journal of Animal Nutrition, 2019, 31(10):4817-4824. (in Chinese)

[19]
金永燕, 郑春田, 陈伟, 等. 亚硒酸钠和酵母硒对蛋鸭产蛋性能、蛋品质、蛋硒含量和蛋硒转化率的影响[J]. 动物营养学报, 2023, 35(3):1622-1637.

DOI

JIN Y Y, ZHENG C T, CHEN W, et al. Effects of sodium selenite and selenium yeast on laying performance,egg quality,egg selenium content and egg selenium conversion rate of laying ducks[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1622-1637. (in Chinese)

[20]
王慧欣, 高庆涛, 黎家恒, 等. 不同硒源对蛋鸡生产性能、蛋品质、鸡蛋硒含量以及血液指标的影响[J]. 动物营养学报, 2025, 37(10):6744-6753.

DOI

WANG H X, GAO Q T, LI J H, et al. Effects of different selenium sources on performance,egg quality,egg selenium content and blood indices of laying hens[J]. Chinese Journal of Animal Nutrition, 2025, 37(10):6744-6753. (in Chinese)

[21]
孟海蓝, 王嘉宁, 朱连勤, 等. 壳聚糖硒对蛋雏鸡血清抗氧化指标和肝脏谷胱甘肽过氧化物酶mRNA表达的影响[J]. 中国畜牧杂志, 2020, 56(9):197-200.

MENG H L, WANG J N, ZHU L Q, et al. Effect of chitosan selenium on antioxidant capacity and mRNA expression of glutathione peroxidases of chickens[J]. Chinese Journal of Animal Science, 2020, 56(9):197-200. (in Chinese)

[22]
GOLIN A, VIANA A B, DRESSLER V L, et al. Selenite protects human peripheral blood mononuclear cells (PBMCs) from CdCl2 cytotoxicity[J]. Journal of Trace Elements in Medicine and Biology, 2025, 91:127734.

DOI

[23]
徐凤文, 梁小军, 陈勇, 等. 饲粮中添加亚硒酸钠对猪肉品质的影响[J]. 畜牧业环境, 2025(13):16-18.

XU F W, LIANG X J, CHEN Y, et al. Effects of dietary sodium selenite supplementation on pork quality[J]. Animal Industry and Environment, 2025(13):16-18. (in Chinese)

[24]
李柯. 亚硒酸钠对三甲基氯化锡诱导鸡脾脏损伤的保护作用[D].硕士学位论文. 哈尔滨: 东北农业大学, 2025.

LI K. Protective effect of sodium selenite on trimethyltin chloride-induced chicken spleen injury[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2025. (in Chinese)

[25]
KEPKA-BORKOWSKA K, BORKOWSKI M, CHAŁAŚKIEWICZ K, et al. Deoxynivalenol toxicity along the gut-liver-brain axis in animal models:mechanisms of action and strategies for mitigation[J]. Food and Chemical Toxicology, 2025, 206:115766.

DOI

[26]
MISHRA S, KAPOOR R, SUSHMA, et al. Deoxynivalenol induces drp-1-mediated mitochondrial dysfunction via elevating oxidative stress[J]. Chemical Research in Toxicology, 2024, 37(7):1139-1154.

DOI PMID

[27]
WANG W W, ZHU J Q, CAO Q Y, et al. Dietary catalase supplementation alleviates deoxynivalenol-induced oxidative stress and gut microbiota dysbiosis in broiler chickens[J]. Toxins, 2022, 14(12):830.

DOI

[28]
刘阳. 呕吐毒素诱导鸡胚肠黏膜上皮细胞自噬模型的建立[D].硕士学位论文. 青岛: 青岛农业大学, 2024.

LIU Y. Establishment of an autophagy model of chicken embryonic intestinal epithelial cells induced by vomit toxin[D].Master’s Thesis. Qingdao: Qingdao Agricultural University, 2024. (in Chinese)

[29]
孙杰雨. LS-CT-Se经PI3K-mTOR通路抑制DON诱导鸡胚肠道损伤的研究[D].硕士学位论文. 青岛: 青岛农业大学, 2025.

SUN J Y. A study on the inhibition of DON-induced intestinal injury in chicken embryos by LS-CT-Se via the PI3K-mTOR pathway[D].Master’s Thesis. Qingdao: Qingdao Agricultural University, 2025. (in Chinese)

[30]
梁姝婕, 江云飞, 左建军, 等. 脱氧雪腐镰刀菌烯醇对畜禽的氧化损伤及外源抗氧化剂的保护作用[J]. 动物营养学报, 2024, 36(12):7513-7521.

DOI

LIANG S J, JIANG Y F, ZUO J J, et al. Oxidative damage of deoxynivalenol to animals and protective effect of exogenous antioxidants[J]. Chinese Journal of Animal Nutrition, 2024, 36(12):7513-7521. (in Chinese)

DOI

[31]
吴启超, 徐义斌, 邓先德, 等. 微量元素硒的生物学功能及其在家禽生产中的研究进展[J]. 黑龙江畜牧兽医, 2025(5):75-80.

WU Q C, XU Y B, DENG X D, et al. Research progress on biological functions of trace element selenium and its application in poultry production[J]. Heilongjiang Animal Science and Veterinary Medicine, 2025(5):75-80. (in Chinese)

[32]
PESTKA J J. Mechanisms of deoxynivalenol-induced gene expression and apoptosis[J]. Food Additives & Contaminants:Part A, 2008, 25(9):1128-1140.

[33]
NUNNARI J, SUOMALAINEN A. Mitochondria:in sickness and in health[J]. Cell, 2012, 148(6):1145-1159.

DOI

[34]
KHAJEH BAMI M, AFSHARMANESH M, ESPAHBODI M, et al. Effects of dietary nano-selenium supplementation on broiler chicken performance,meat selenium content,intestinal microflora,intestinal morphology,and immune response[J]. Journal of Trace Elements in Medicine and Biology, 2022, 69:126897.

DOI

[35]
位兰, 崔敏, 李慧聪, 等. 有机硒对黄曲霉毒素B1致兔盲肠组织结构和抗氧化能力变化的干预作用[J]. 黑龙江畜牧兽医, 2024(20):86-90,128-129.

WEI L, CUI M, LI H C, et al. Interventional effects of organic selenium on the changes in tissue structure and antioxidant capacity of rabbit cecum induced by aflatoxin B1[J]. Heilongjiang Animal Science and Veterinary Medicine, 2024(20):86-90,128-129. (in Chinese)

[36]
LEI Z Q, ALI I, YANG M, et al. Non-esterified fatty acid-induced apoptosis in bovine granulosa cells via ROS-activated PI3K/AKT/FoxO1 pathway[J]. Antioxidants, 2023, 12(2):434.

DOI

[37]
NATHAN C, CUNNINGHAM-BUSSEL A. Beyond oxidative stress:an immunologist’s guide to reactive oxygen species[J]. Nature Reviews Immunology, 2013, 13(5):349-361.

DOI

[38]
CHRISTOFIDOU-SOLOMIDOU M, MUZYKANTOV V R. Antioxidant strategies in respiratory medicine[J]. Treatments in Respiratory Medicine, 2006, 5(1):47-78.

DOI

[39]
BHAT A V, HORA S, PAL A, et al. Stressing the (Epi) genome:dealing with reactive oxygen species in cancer[J]. Antioxidants & Redox Signaling, 2018, 29(13):1273-1292.

[40]
MOTOHASHI H, YAMAMOTO M. Nrf2-Keap1 defines a physiologically important stress response mechanism[J]. Trends in Molecular Medicine, 2004, 10(11):549-557.

DOI PMID

[41]
SCHERZ-SHOUVAL R, ELAZAR Z. ROS,mitochondria and the regulation of autophagy[J]. Trends in Cell Biology, 2007, 17(9):422-427.

DOI

[42]
WANG P W, HUANG L B, YANG W Y, et al. Deoxynivalenol induces inflammation in the small intestine of weaned rabbits by activating mitogen-activated protein kinase signaling[J]. Frontiers in Veterinary Science, 2021, 8:632599.

DOI

[43]
何松. 姜黄素等9种中药单体对呕吐毒素诱导牛小肠上皮细胞损伤的保护作用研究[D].硕士学位论文. 新乡: 河南科技学院, 2024.

HE S. Protective effect of curcumin and other nine kinds of traditional Chinese medicine monomers on the cellular damage of bovine intestinal epithelial cells induced by deoxynivalenol[D].Master’s Thesis. Xinxiang: Henan Institute of Science and Technology, 2024. (in Chinese)

[44]
刘丽君, 郝澍, 闫晨鸽, 等. 硒蛋氨酸通过肠道菌群及其代谢产物拮抗呕吐毒素诱导的肠道氧化应激[C]// 第十四届亚洲营养大会论文集.成都:亚洲营养学会联合会, 2023:346.

LIU L J, HAO S, YAN C G, et al. Selenomethionine alleviates deoxynivalenol-induced intestinal oxidative stress via modulating gut microbiota and its metabolites[C]// Abstract Book of the 14th Asian Congress of Nutrition.Chengdu:Federation of Asian Nutrition Societies, 2023:346. (in Chinese)

[45]
杨芸瑜, 生冉, 陈亮伍, 等. 日粮添加维生素E和有机硒对42日龄怀乡鸡血清抗氧化指标的影响[J]. 广东饲料, 2018, 27(12):19-23.

YANG Y Y, SHENG R, CHEN L W, et al. Effects of vitamin E and organic selenium on serum antioxidant indices of 42-day-old Huaixiang chickens[J]. Guangdong Feed, 2018, 27(12):19-23. (in Chinese)

[46]
MAIURI M C, ZALCKVAR E, KIMCHI A, et al. Self-eating and self-killing:crosstalk between autophagy and apoptosis[J]. Nature Reviews Molecular Cell Biology, 2007, 8(9):741-752.

DOI

[47]
张珂菲. 丹参酮ⅡA对呕吐毒素致猪小肠上皮细胞损伤的保护作用[D].硕士学位论文. 郑州: 河南农业大学, 2023.

ZHANG K F. Protective effect of tanshinone ⅡA on vomiting toxin induced damage to porcine small intestinal epithelial cells[D].Master’s Thesis. Zhengzhou: Henan Agricultural University, 2023. (in Chinese)

[48]
黄周寅. 硒代蛋氨酸对呕吐毒素致仔猪肠道损伤的缓解作用及其机制初探[D].硕士学位论文. 南昌: 江西农业大学, 2024.

HUANG Z Y. The ameliorative effects and underlying mechanism of selenomethionine on intestinal injury induced by deoxynivalenol in piglets[D].Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2024. (in Chinese)

[49]
师润. 人源福氏志贺菌对鸡肠上皮细胞侵袭特性及其机制研究[D].硕士学位论文. 郑州: 河南农业大学, 2013.

SHI R. Invasive characteristics and mechanism of human source S. flexneri on chicken intestinal epithelial cells[D].Master’s Thesis. Zhengzhou: Henan Agricultural University, 2013. (in Chinese)

[50]
邢鹏程. 硒代蛋氨酸拮抗四溴双酚A暴露致鲤鱼肝细胞自噬和凋亡作用机制的研究[D].硕士学位论文. 哈尔滨: 东北林业大学, 2024.

XING P C. Study on the mechanism of selenomethionine antagonizing autophagy and apoptosis induced by exposure to tetrabromobisphenol A in common carp hepatocytes[D].Master’s Thesis. Harbin: Northeast Forestry University, 2024. (in Chinese)

[51]
刘婉儿, 张乐乐, 王婷, 等. 硒介导PI3K/Akt/mTOR信号通路对子痫前期滋养细胞自噬的调控作用及机制[J]. 山东医药, 2024, 64(34):34-37.

LIU W E, ZHANG L L, WANG T, et al. Regulatory effect of selenium on autophagy in preeclampsia trophoblast cells through the PI3K/Akt/mTOR signaling pathway[J]. Shandong Medical Journal, 2024, 64(34):34-37. (in Chinese)

[52]
SUZUKI K T, DOI C, SUZUKI N. Metabolism of 76Se-methylselenocysteine compared with that of 77Se-selenomethionine and 82Se-selenite[J]. Toxicology and Applied Pharmacology, 2006, 217(2):185-195.

DOI

Outlines

/