RESEARCH PAPER

Effects and Mechanisms of Fenugreek Leaf Powder on Liver Lipid Metabolism of Yellow-Feathered Chickens Based on Metabolomics

  • CAO Hao , 1, 2 ,
  • XIN Ruihua 2 ,
  • SUN Yanling 1 ,
  • QIU Zhengying 2 ,
  • ZHAO Xinghua 1 ,
  • HE Xin , 1, *
Expand
  • 1 College of Veterinary Medicine, Hebei Agricultural University, Baoding 071000, China
  • 2 Gansu Provincial Key Laboratory of New Veterinary Drug Engineering, Key Laboratory of Veterinary Drug Development, Ministry of Agriculture and Rural Affairs, Gansu Provincial Engineering and Technology Research Center for Traditional Chinese Veterinary Medicines, Lanzhou Institute of Husbandry and Pharmaceutical Sciences, Chinese Academy of Agricultural Sciences, Lanzhou 730050, China
* professor, E-mail:

Received date: 2025-11-30

  Online published: 2026-06-13

Abstract

This experiment aimed to investigate the effects and mechanisms of dietary fenugreek leaf powder (FLP) supplementation on liver lipid metabolism in yellow-feathered chickens using liquid chromatograph mass spectrometer (LC-MS)-based untargeted liver metabolomics. A total of 240 twenty-one-day-old yellow-feathered chickens were randomly allocated into 4 groups with 6 replicates per group ad 10 birds per replicate. The control group (CON group) was fed a basal diet, and the experimental groups were fed the basal diets supplemented with 0.5% (0.5%FLP group), 1.0% (1.0%FLP group) and 2.0% (2.0%FLP group) FLP, respectively. The experiment lasted for 42 days. The results showed as follows: 1) compared with the CON group, the final body weight and average daily gain of 0.5%FLP group and 1.0%FLP group were significantly increased (P<0.05), and the average daily feed intake of 0.5%FLP group, 1.0%FLP group and 2.0%FLP group were significantly increased (P<0.05). 2) Compared with the CON group, the liver weight, liver index and abdominal fat percentage of 0.5%FLP group, 1.0%FLP group and 2.0%FLP group were significantly decreased (P<0.05). 3) The liver histopathological results revealed that dietary FLP reduced the liver lipid deposition. 4) Compared with the CON group, the activities of alanine aminotransferase (ALT) and aspartate aminotransferase (AST) and contents of triglyceride (TG), total cholesterol (TC), low-density lipoprotein cholesterol (LDL-C) in serum of 0.5%FLP group, 1.0%FLP group and 2.0%FLP group were significantly decreased (P<0.05), and the serum high-density lipoprotein cholesterol (HDL-C) content was significantly increased (P<0.05). 5) The metabolomics pathway enrichment analysis revealed that dietary FLP down-regulated the fatty acid biosynthesis and unsaturated fatty acid biosynthesis pathways. 6) Compared with the CON group, the mRNA relative expression levels of fatty acid synthase (FASN), acetyl-CoA carboxylase (ACC), sterol regulatory element-binding protein 1 (SREBP1), stearoyl-CoA desaturase (SCD) and 3-hy-droxy-3-methyl glutaryl coenzyme A reductase (HMGCR) in liver of 0.5%FLP group, 1.0%FLP group and 2.0%FLP group were significantly decreased (P<0.05), and the mRNA relative expression levels of peroxisome proliferation-activated receptor alpha (PPARα), microsomal triglyceride transfer protein (MTTP) and carnitine palmitoyltransferase 1A (CPT1A) in liver were significantly increased (P<0.05). In conclusion, the FLP has improving effects on the growth performance and liver lipid metabolism of yellow-feathered chickens. By down-regulating the expression of lipogenic genes (FASN, SREBP1) and up-regulating fatty acid oxidation genes (PPARα, CPT1A), FLP modulates fatty acid and unsaturated fatty acid biosynthesis in liver, ultimately improving blood lipid content and reducing liver lipid deposition of yellow-feathered broilers.

Cite this article

CAO Hao , XIN Ruihua , SUN Yanling , QIU Zhengying , ZHAO Xinghua , HE Xin . Effects and Mechanisms of Fenugreek Leaf Powder on Liver Lipid Metabolism of Yellow-Feathered Chickens Based on Metabolomics[J]. Chinese Journal of Animal Nutrition, 2026 , 38(6) : 4525 -4540 . DOI: 10.12418/CJAN2026.363

近年来,肉鸡的生长速度和饲料利用率逐渐提高,但由于饲养集约化程度的提高和饲养模式的改变,使肉鸡腹部脂肪沉积过多、代谢紊乱甚至死亡率增加等问题日益严峻[1]。肉鸡体内过度的脂肪沉积逐渐成为家禽生产中的关键问题之一。脂肪沉积是脂质吸收、合成及氧化代谢过程的综合结果[2],该过程取决于脂肪生成与脂肪酸β-氧化之间的动态平衡[3],它不仅降低饲料利用率,增加养殖成本,同时也因不符合现代消费者对肉类营养品质的偏好,从而影响市场接受度[4]。多种饲料添加剂可影响肉鸡肝脏脂肪生成、脂质氧化及脂质转运过程,进而调节全身脂质代谢稳态与组织脂肪沉积水平[5-6]
在减抗替抗的背景下,中草药饲料添加剂因其天然、多靶点调控和低残留风险的优势备受研究者们关注[7]。胡芦巴(Trigonella foenum-graecum)是一种药食同源的豆科传统中药,主要产地为亚洲、非洲和拉丁美洲[8],其种子作为药用部分,已被应用2 500多年,具有抗菌、抗炎、抗氧化、抗衰老、抗癌和免疫调节等药理作用[9]。胡芦巴叶的产量是其种子的5~6倍,且价格低廉[10]。有研究证实,胡芦巴叶中含有胡芦素、甾体皂苷、半乳甘露聚糖、酚类、类黄酮类等成分[9,11],具有降脂、降胆固醇、保肝、抗炎、抗氧化和增强免疫力等药理作用[12]。此外,动物在饲喂中草药后会引起体内代谢物的改变,代谢组学分析可以了解动物的生理状态,评估中草药对动物机体的影响[13]。然而,目前关于胡芦巴叶粉(fenugreek leaf powder,FLP)在黄羽肉鸡生产中的研究相对有限,其影响肉鸡肝脏代谢组学的研究鲜见报道。因此,本试验旨在探究饲粮中添加FLP对黄羽肉鸡生长性能、腹脂率、肝脏功能和血清生化指标的影响,利用液相色谱-质谱联用的肝脏非靶向代谢组学技术探究FLP对肝脏代谢物的影响,并通过测定肝脏中脂质代谢相关基因的mRNA相对表达水平探究其潜在机制,为FLP的高效开发和利用提供理论依据和实践指导。

1 材料与方法

1.1 伦理声明

动物试验经中国农业科学院兰州畜牧与兽药研究所动物伦理委员会批准,许可号:SYXK(Gan)2024-024,所有动物试验均按照动物伦理委员会的指导方针进行。

1.2 试验材料

FLP于2024年4月购自甘肃省临夏回族自治州,密封保存备用。其活性成分含量(干物质基础)经测定如下:总黄酮1.42%(采用硝酸铝比色法[14],以芦丁为标准品测定)、总多酚0.09%(采用福林酚法[15],以没食子酸为标准品测定)。

1.3 试验设计

选择240只21日龄的雄性黄羽肉鸡(购自甘肃省兰州市某养鸡场),随机分为4组,每组6个重复,每个重复10只鸡。对照组(CON组)饲喂基础饲粮,0.5%FLP组、1.0%FLP组和2.0%FLP组分别在基础饲粮中添加0.5%、1.0%和2.0%的FLP。试验期42 d。按照《产蛋鸡和肉鸡配合饲料》(GB/T 5916—2020)配制基础饲粮,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
21~41日龄
21 to 41
days of age
42~63日龄
42 to 63
days of age
原料 Ingredients
玉米 Corn 65.90 66.40
豆粕 Soybean meal 20.30 16.40
次粉 Wheat middling 6.00 8.00
大豆油 Soybean oil 5.00 6.50
石粉 Limestone 1.50 1.40
食盐 NaCl 0.30 0.30
预混料 Premix1) 1.00 1.00
合计 Total 100.00 100.00
营养水平 Nutrients levels2)
代谢能 ME/(MJ/kg) 12.76 12.59
粗蛋白质 CP 19.08 17.04
粗灰分 Ash 4.42 4.47
赖氨酸 Lys 0.95 0.90
蛋氨酸 Met 0.40 0.35
蛋氨酸+半胱氨酸 Met+Cys 0.95 0.80
钙 Ca 0.85 0.95
总磷 TP 0.61 0.61

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of diets:VA 5 000 IU,VD3 2 000 IU,VE 10 IU,VK3 2.5 mg,VB1 2 mg,VB2 5 mg,VB12 0.5 mg,烟酸 nicotinic acid 40 mg,泛酸 pantothenic acid 10 mg,叶酸 folic acid 1 mg,生物素 biotin 0.2 mg,Cu (as copper sulfate) 8 mg,Fe (as ferrous sulfate) 80 mg,Mn (as manganese sulfate) 120 mg,Zn (as zinc sulfate) 100 mg,I (as potassium iodide) 1 mg,Se (as sodium selenite) 0.3 mg。
2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.4 饲养管理

试验期间,各个重复之间由围栏隔开,围栏长度为1.5 m,宽度为1.0 m,围栏面积为1.5 m2。肉鸡饲养环境温度为(22±2) ℃,相对湿度为(50±5)%,12 h光照,自由采食和饮水,正常接种免疫。

1.5 样本的采集与处理

63日龄时进行样本采集,样本采集前禁食12 h,称取肉鸡活重;各组肉鸡经翅下静脉采血后,以846×g离心10 min,收集上层血清,于-80 ℃保存待测;肉鸡经颈静脉放血处死后立即解剖,取肝脏组织,用磷酸盐缓冲液(PBS)冲洗并用吸水纸吸取肝脏表面水分后称重,随即置于液氮中保存备用;剥离腹部脂肪,用PBS冲洗并用吸水纸吸取腹部脂肪表面水分后称重[16]

1.6 指标测定

1.6.1 饲粮常规营养成分

代谢能参考《中国饲料成分及营养价值表(2023年第34版)》计算。粗蛋白质含量参照GB/T 6432—2018的方法测定,粗灰分含量参照GB/T 6438—2007的方法测定,钙含量参照GB/T 6436—2018的方法测定,氨基酸含量参考GB/T 18246—2019的方法测定,总磷含量参照GB/T 6437—2018的方法测定。

1.6.2 生长性能

在试验的第1天和第42天对肉鸡进行称重,每天记录饲料消耗量,计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G),各指标的计算方法参考凌晨涛等[17]

1.6.3 肝脏指数和腹脂率的测定

取各组肉鸡的完整肝脏和腹部脂肪,使用PBS冲洗并用吸水纸吸取肝脏和腹部脂肪表面水分,称量肝脏重量和腹部脂肪重量,计算肝脏指数[18]和腹脂率,腹脂率参照《家禽生产性能名词术语和度量统计方法》(NY/T 823—2020)计算。

1.6.4 肝脏组织形态学

肝脏使用4%多聚甲醛固定。制成石蜡切片,用苏木精-伊红(HE)对3 μm厚的切片进行染色。另取固定好的肝脏组织包埋在Tissue-Tek O.C.T.化合物中,制备10 μm厚的切片并用油红O染色,然后用苏木精复染。使用光学显微镜观察并获取图像[19]。使用ImageJ软件统计油红O切片中脂滴面积,计算相对脂滴面积。

1.6.5 血清生化指标

使用全自动动物生化分析仪(BS-240VET,深圳迈瑞动物医疗科技股份有限公司)测定血清谷丙转氨酶(ALT)、谷草转氨酶(AST)活性和甘油三酯(TG)、总胆固醇(TC)、低密度脂蛋白胆固醇(LDL-C)和高密度脂蛋白胆固醇(HDL-C)含量,试剂盒购自深圳迈瑞生物医疗电子股份有限公司。

1.6.6 肝脏非靶向代谢组学分析

肝脏非靶向代谢组学委托杭州广科安德生物科技有限公司协助完成。步骤如下:取液氮冷冻的肝脏组织于预冷研钵中,在持续补充液氮条件下充分研磨至粉末状;精确称取5 mg组织粉末置于2 mL EP管中,加入400 μL预冷的80%甲醇溶液(含内标混合液),于组织研磨仪中破碎匀浆,续加600 μL同种提取液,涡旋振荡1 min;4 ℃、14 000×g离心10 min,转移上清至新离心管;取等量各样本上清混合制备质控样本(QC);所有样本经真空冷冻干燥后,用100 μL 10%甲醇水溶液复溶,经涡旋30 s、超声1 min及4 ℃、14 000×g离心10 min,最终取上清液转移至液相色谱-质谱(LC-MS)专用进样瓶进行非靶向代谢组学分析。

1.6.7 实时荧光定量PCR(qRT-PCR)分析

使用Trizol试剂(湖南艾科瑞生物工程有限公司)提取肝脏的总RNA。使用紫外可见分光光度计(德国Eppendorf公司)测定RNA的质量和浓度,使用带有gDNA Eraser的反转录预混型试剂盒(湖南艾科瑞生物工程有限公司)进行cDNA合成。随后用2×SYBR Green qPCR预混液Ex Taq Ⅱ(湖南艾科瑞生物工程有限公司)和实时PCR系统(美国Applied Biosystems公司)进行qRT-PCR。PCR反应条件为:95 ℃预变性5 min,95 ℃变性10 s,60 ℃退火 20 s,72 ℃延伸20 s,40个循环。β-肌动蛋白(β-actin)作为内参基因,并使用2-ΔΔCt方法计算目的基因mRNA相对表达量。引物序列见表2,由北京西贝宏程生物科技有限公司合成。
表2 引物序列

Table 2 Primer sequences

基因 Genes 引物序列 Primer sequences (5'—3')
过氧化物酶增殖物激活受体α
PPARα
F:GTGTGGCTGCTGCTTAGAGA
R:CCGCATTTTGAAGGACGGTT
3-羟基-3-甲基戊二酸单酰辅酶A还原酶
HMGCR
F:TTCTCGGCCGGGCGATTT
R:TTCCCATGGATGAGAGGCCA
过氧化物酶增殖物激活受体γ
PPARγ
F:CTCCGGCTGAGACTTGACAG
R:AATTAACGGGCCAAAACGGC
脂肪酸合酶
FASN
F:CAAGCAAACGTGACTGCGAA
R:CCGTGCAATGCCATCTTAGC
微粒体甘油三酯转移蛋白
MTTP
F:CACGTACGGCCTAGACATCC
R:CTGTGAAAACTGCACCGTGG
乙酰辅酶A羧化酶1A
ACC
F:TTCTCACACGCTCAGGTCAC
R:TTCTGTTTGGGTGGGAGGTG
肉毒碱棕榈酰基转移酶
CPT1A
F:GACGGACACTGCAAAGGAGA
R:GACCGGACGGTTTCAGTTCT
硬脂酰辅酶A去饱和酶
SCD
F:CCCCTACGACTACTCCACCA
R:GTAAGGGAAAGGGACAGGGC
固醇调节元件结合蛋白1
SREBP1
F:GAGGTGGCGAAGGCGGAGGTGATGGAGA
R:TCAGGCTCGGAGTCACTGCTGCTGTTGC
β-肌动蛋白
β-actin
F:TGCGTGACATCAAGGAGAAG
R:TGCCAGGGTACATTGTGGTA

1.7 数据统计与分析

所有试验数据采用SPSS 26.0和GraphPad Prism 8.0软件进行数据分析和结果展示,通过单因素方差分析检验试验数据,并进行Duncan氏多重比较,以分析各组平均值之间差异的显著性。结果以“平均值±标准差”表示,P<0.05表示差异显著。

2 结果与分析

2.1 FLP对黄羽肉鸡生长性能的影响

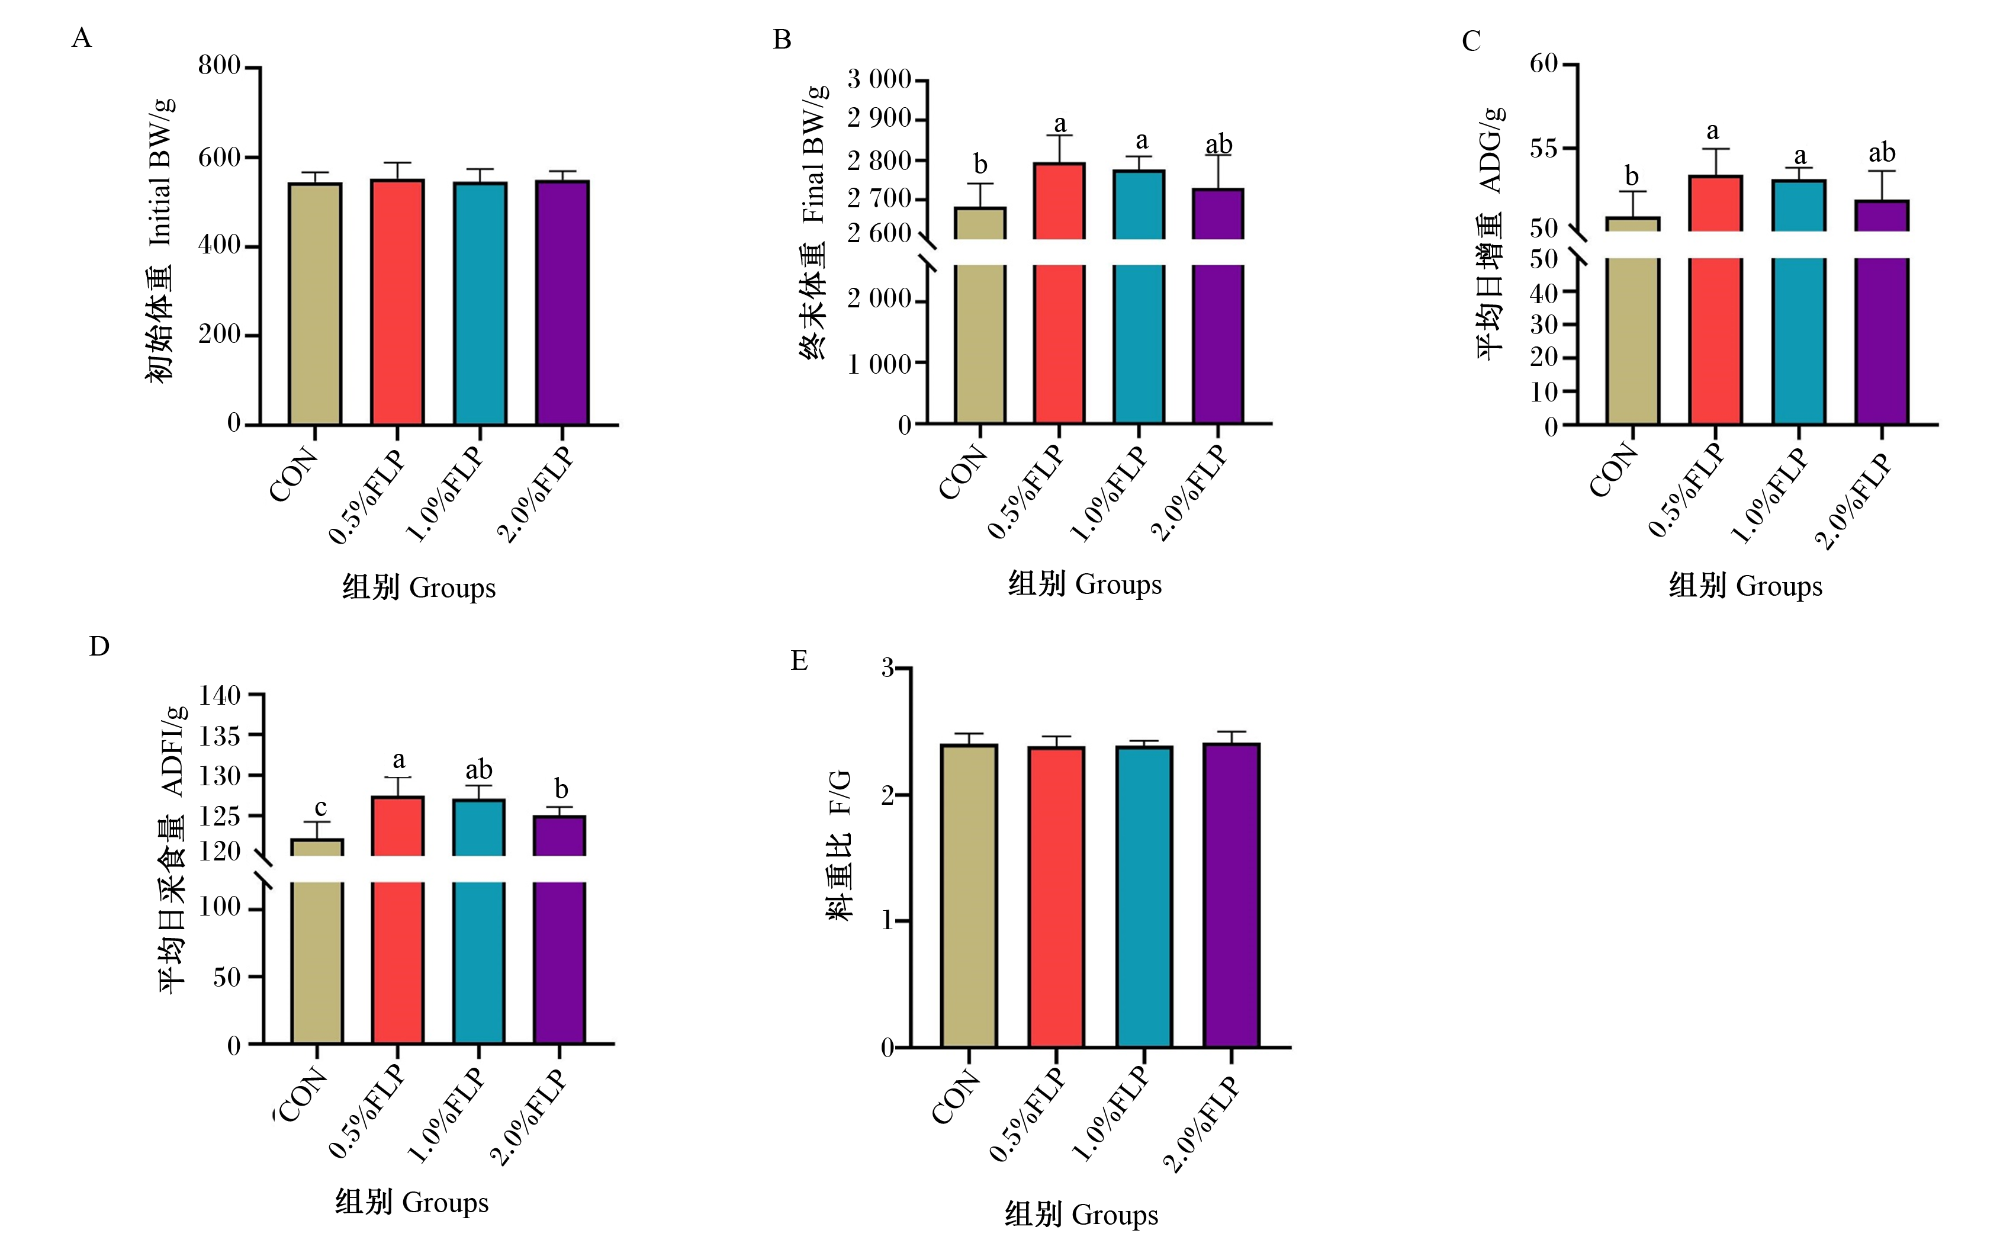
图1可知,各组之间初始体重和F/G无显著差异(P>0.05)。与CON组相比,0.5%FLP组的终末体重、ADG和ADFI分别显著增加了4.21%、4.93%和4.31%(P<0.05),1.0%FLP组的终末体重、ADG和ADFI分别显著增加了3.52%、4.38%和4.03%(P<0.05),2.0%FLP组的ADFI显著增加了2.36%(P<0.05)。
图1 FLP对黄羽肉鸡生长性能的影响

数据柱标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下图同。

Fig.1 Effects of FLP on growth performance of yellow-feathered chickens

Value columns with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 FLP对黄羽肉鸡肝脏重量、肝脏指数、腹脂率和肝脏组织形态的影响

表3可知,与CON组相比,0.5%FLP组、1.0%FLP组和2.0%FLP组的肝脏重量、肝脏指数和腹脂率均显著降低(P<0.05)。此外,2.0%FLP组的肝脏重量和腹脂率均显著低于0.5%FLP组(P<0.05)。
表3 FLP对黄羽肉鸡肝脏重量、肝脏指数和腹脂率的影响

Table 3 Effects of FLP on liver weight, liver index and abdominal fat percentage of yellow-feathered chickens

项目
Itmes
肝脏重量
Liver weight/g
肝脏指数
Liver index
腹脂率
Abdominal fat percentage/%
组别 Groups
CON 44.38±3.08a 17.31±1.82a 3.37±0.43a
0.5%FLP 39.90±3.34b 14.11±1.35b 2.81±0.26b
1.0%FLP 37.82±1.50bc 13.60±0.69b 2.59±0.23bc
2.0%FLP 35.06±3.52c 12.65±1.36b 2.18±0.37c
PP-value <0.001 <0.001 0.002

同列数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

图2可知,肝脏组织HE染色结果表明,CON组肉鸡肝脏脂肪细胞较大,肝细胞排列疏松,而饲粮中添加FLP后减小了肝脏脂肪细胞的体积。肝脏组织油红O染色结果表明,CON组肝脏中脂肪沉积较多;与CON组相比,0.5%FLP组、1.0%FLP组和2.0%FLP组的相对脂滴面积显著降低(P<0.05)。
图2 FLP对黄羽肉鸡肝脏组织形态的影响

A:肝脏切片HE染色(400×);B:肝脏切片油红O染色(400×);C:相对脂滴面积。

Fig.2 Effects of FLP on liver tissue morphology of yellow-feathered chickens

A: HE staining of liver slices (400×); B: oil red O staining of liver slices (400×); C: relative lipid droplet area.

2.3 FLP对黄羽肉鸡血清生化指标的影响

表4可知,与CON组相比,0.5%FLP组、1.0%FLP组和2.0%FLP组的血清ALT、AST活性和TG、TC、LDL-C含量显著降低(P<0.05),血清HDL-C含量显著提高(P<0.05)。此外,2.0%FLP组的血清ALT活性和TC、LDL-C含量显著低于0.5%FLP组和1.0%FLP组(P<0.05),2.0%FLP组的血清AST活性显著低于0.5%FLP组(P<0.05)。
表4 FLP对黄羽肉鸡血清生化指标的影响

Table 4 Effects of FLP on serum biochemical parameters of yellow-feathered chickens

项目
Items
谷丙转氨酶
ALT/
(U/L)
谷草转氨酶
AST/
(U/L)
甘油三酯
TG/
(mmol/L)
总胆固醇
TC/
(mmol/L)
低密度脂
蛋白胆固醇
LDL-C/
(mmol/L)
高密度脂
蛋白胆固醇
HDL-C/
(mmol/L)
组别 Groups
CON 7.72±0.54a 260.40±17.89a 0.38±0.09a 3.21±0.15a 0.83±0.12a 1.67±0.19b
0.5%FLP 6.05±0.45b 226.40±14.81b 0.30±0.09b 2.82±0.28b 0.64±0.13b 1.97±0.16a
1.0%FLP 5.87±0.35b 218.30±15.47bc 0.24±0.05b 2.73±0.34b 0.59±0.11b 2.08±0.20a
2.0%FLP 5.02±0.65c 200.77±14.06c 0.23±0.04b 2.17±0.38c 0.44±0.10c 2.15±0.11a
PP-value <0.001 <0.001 0.004 <0.001 <0.001 0.001

2.4 肝脏组织的非靶向代谢组学分析

综合上述结果,2.0%FLP组在调节肝脏脂质代谢表型指标上表现出明显优势,因此选择该组与CON组进行非靶向代谢组学分析。

2.4.1 主成分分析(PCA)和差异代谢物分析

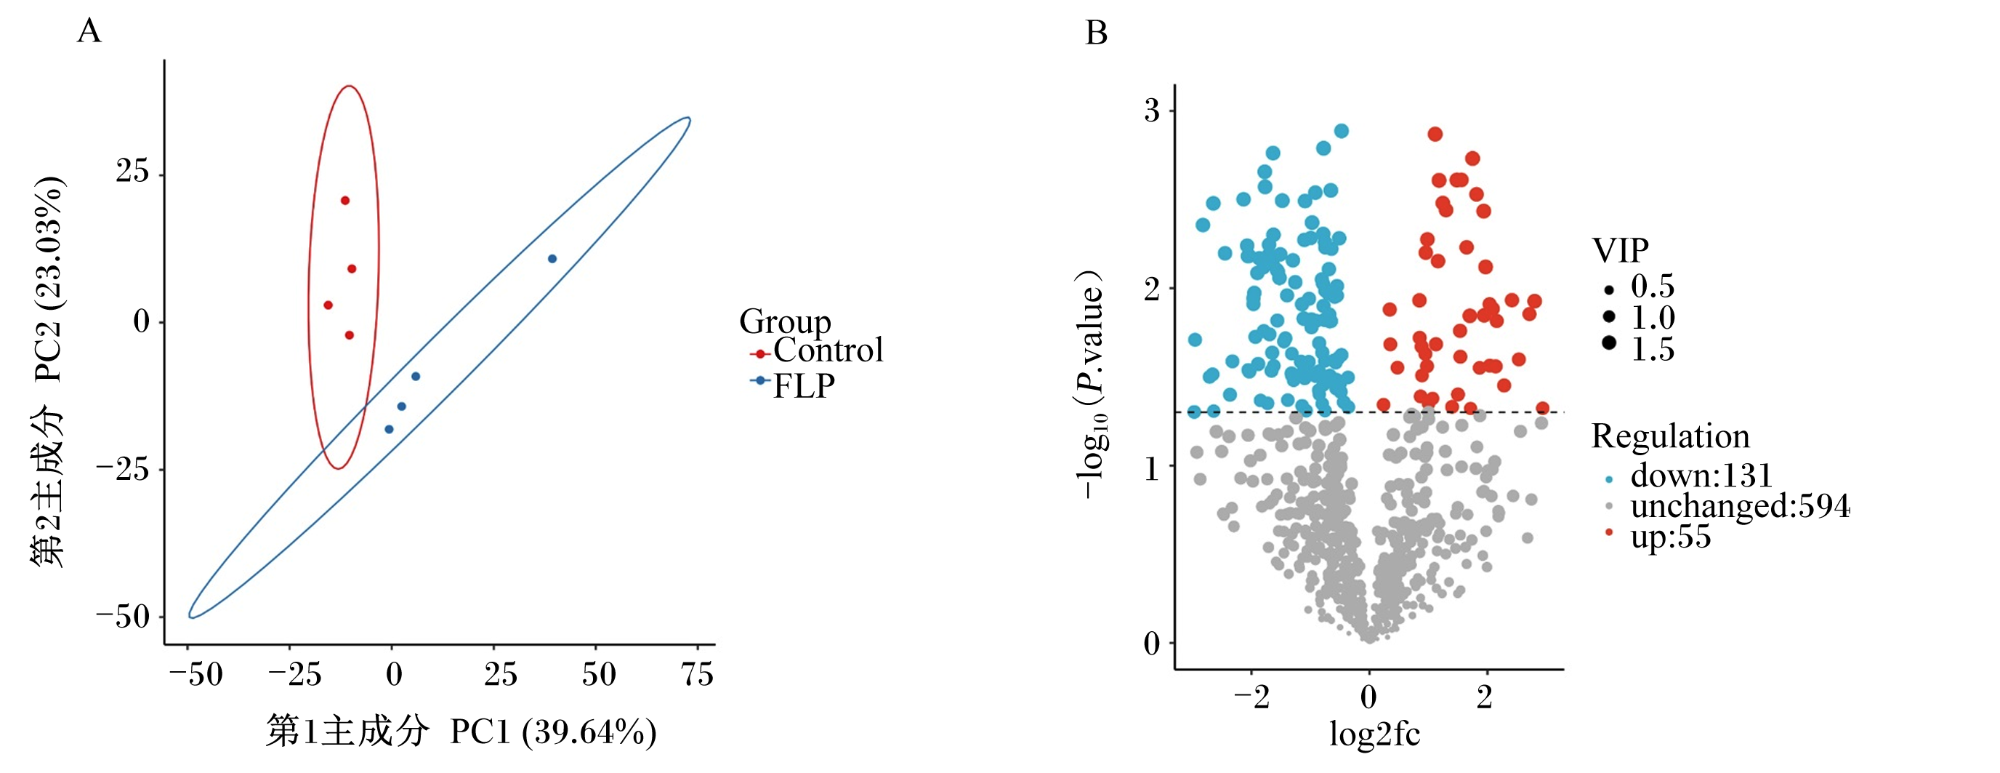
图3-A可知,CON组与2.0%FLP组之间有明显分离,表明2组间代谢物发生了明显变化。第1主成分(PC1)可以解释原始数据集39.64%的特征,第2主成分(PC2)可以解释原始数据集23.03%的特征。由图3-B可知,将CON组与2.0%FLP组之间的差异代谢物按照P<0.05、变量重要性投影(VIP)>1、log2|差异倍数(FC)|>0的标准进行筛选,其中上调的差异代谢产物有55个,包括肌酸、肉碱、3-羟基丁酸、磷酸烯醇式丙酮酸和3-磷酸甘油酸等;下调的差异代谢产物有131个,包括L-异亮氨酸、L-赖氨酸、肉桂酸、辛酸和油酸等。表5列出了上调和下调的差异代谢物中的前10种。
图3 肝脏组织的非靶向代谢组学分析

Group:组别;Control:对照组 control group;FLP:2.0%FLP组 2.0%FLP group;-log10(P.value):-log10(P值) -log10(P-value);VIP:变量投影重要性 variable importance in projection;Regulation:调控;down:下降;unchanged:未变化;up:上升;log2fc:log2差异倍数 log2FC。

A:主成分分析图 PCA chart;B:差异代谢物分析火山图 differential metabolite analysis volcano map。

Fig.3 Non-targeted metabolomic analysis of liver tissue

表5 差异代谢物分析

Table 5 Differentially metabolites analysis

代谢物
Metabolites
log2差异倍数
log2FC
P
P-value
变量重要性投影
VIP
趋势
Tendency
肌酸 Creatine 2.086 0.013 1.597
肉碱 Carnitine 1.592 0.001 1.708
3-羟基丁酸 3-hydroxybutyric acid 1.483 0.002 1.720
磷酸烯醇式丙酮酸 Phosphoenolpyruvate 3.213 0.006 1.562
3-磷酸甘油酸 3-phosphoglyceric acid 2.035 0.012 1.495
维生素K1 Vitamin K1 0.474 0.028 1.380
胸苷 Thymidine 2.936 0.048 1.335
脱氧胸苷酸 Deoxythymidine acid 2.532 0.025 1.447
精氨酰琥珀酸 Argininosuccinic acid 3.885 0.009 1.545
苯乙醇胺 Phenylethanolamine 0.353 0.021 1.425
L-异亮氨酸 L-isoleucine -0.799 0.023 1.550
L-赖氨酸 L-lysine -0.757 0.005 1.588
肉桂酸 Cinnamic acid -0.732 0.010 1.605
肉豆蔻酸(C14∶0) Myristic acid (C14∶0) -2.322 0.026 1.452
辛酸(C8∶0) Octanoic acid (C8∶0) -0.609 0.025 1.405
硬脂酸(C18∶0) Stearic acid (C18∶0) -1.952 0.011 1.573
亚油酸(C18∶2n6) Linoleic acid (C18∶2n6) -1.298 0.007 1.585
油酸(C18∶1) Oleic acid (C18∶1) -1.900 0.008 1.589
花生酸(C20∶0)Arachidate (C20∶0) -2.659 0.031 1.445
肾上腺酸(C22∶4n6) Adrenic acid (C22∶4n6) -1.385 0.043 1.362

↑:上调 up-regulation;↓:下调 down-regulation。

2.4.2 KEGG通路富集分析

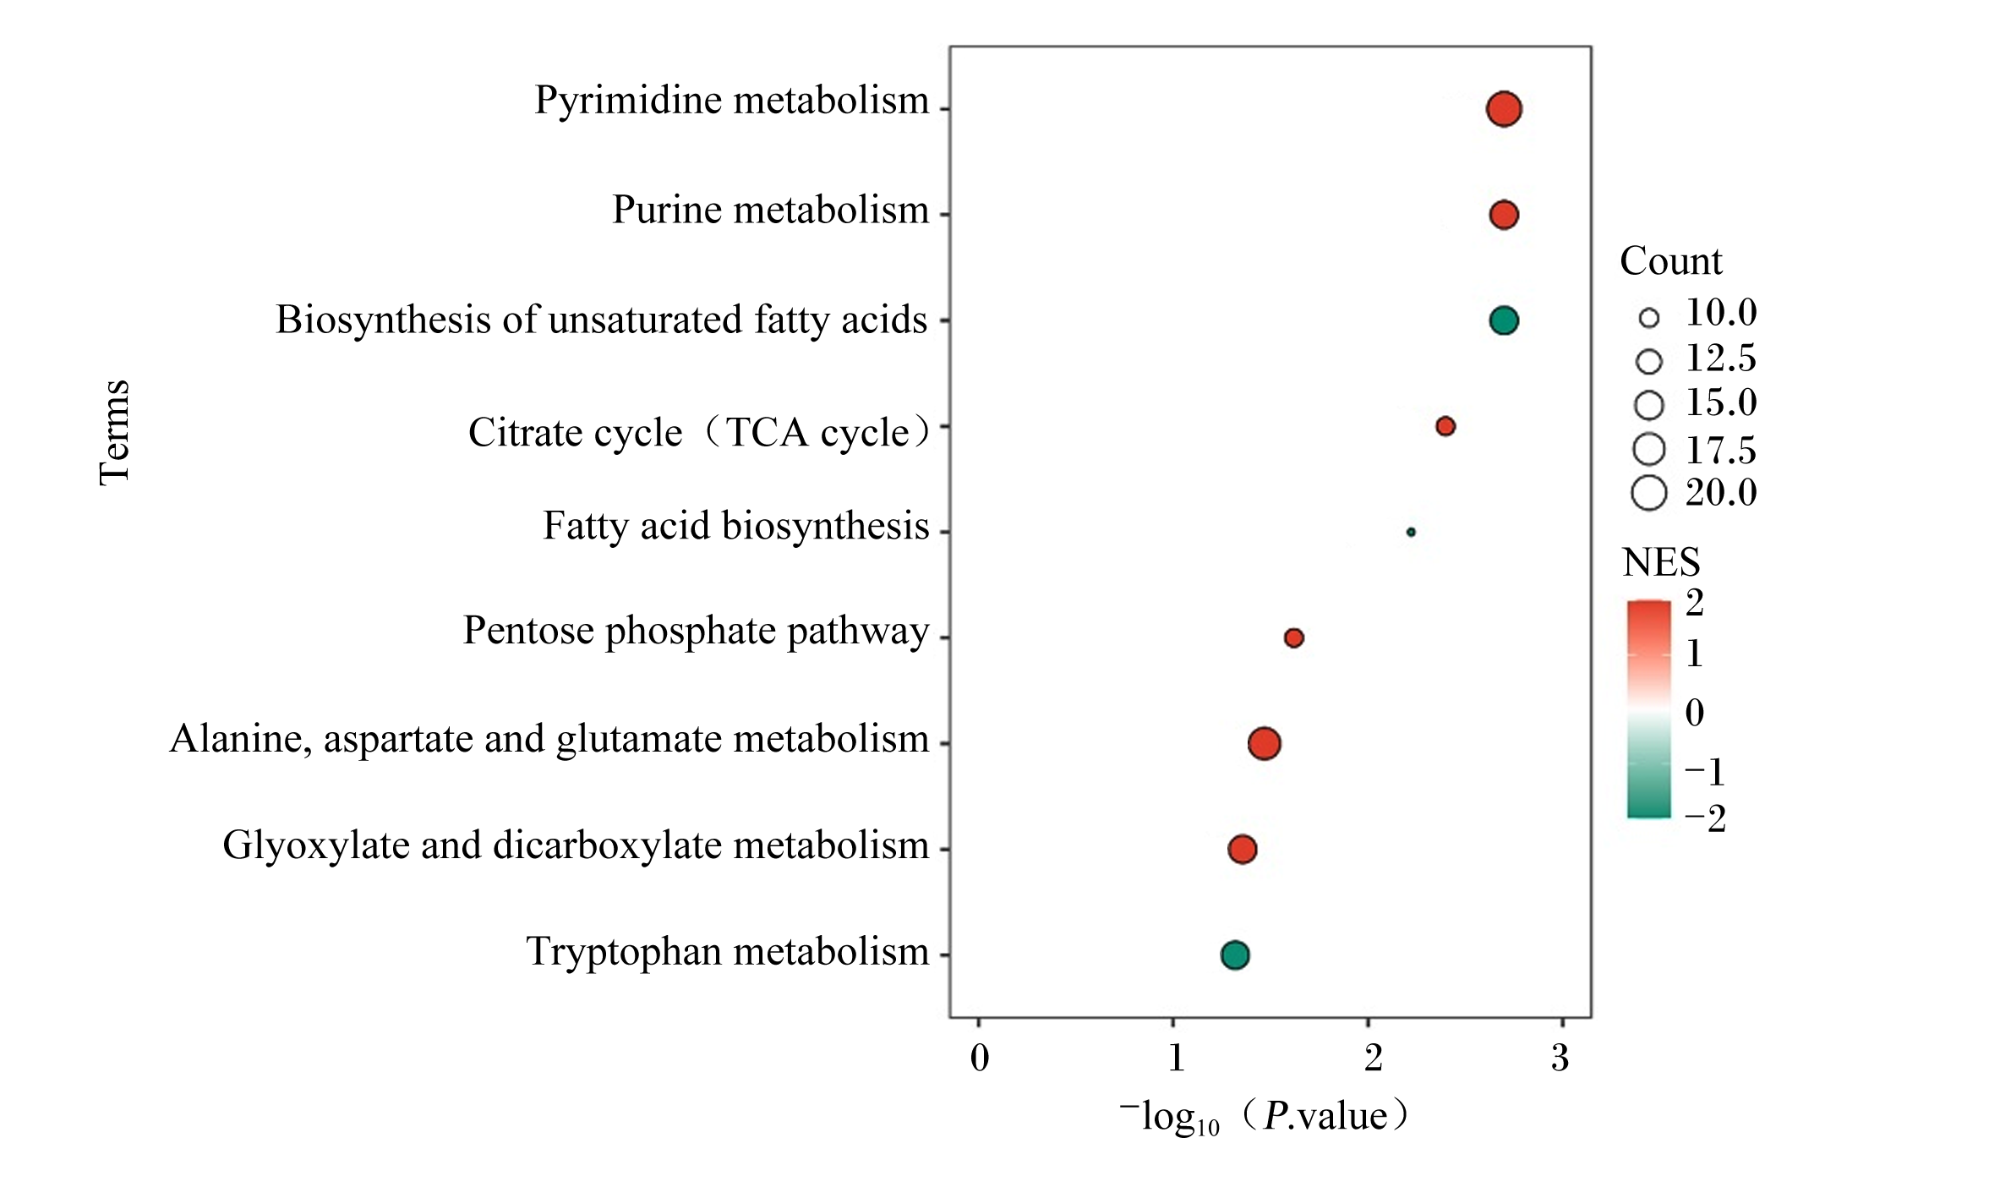
图4可知,差异代谢物KEGG通路富集分析显示,2.0%FLP组与CON组之间有9种代谢通路存在显著差异(P<0.05),包括嘧啶代谢,嘌呤代谢,不饱和脂肪酸生物合成,三羧酸循环,脂肪酸生物合成,戊糖磷酸途径,丙氨酸、天冬氨酸和谷氨酸代谢,乙醛酸和二羧酸代谢,色氨酸代谢。其中,不饱和脂肪酸生物合成、脂肪酸生物合成代谢通路可直接参与肝脏脂质代谢的调节;嘧啶代谢和嘌呤代谢涉及核酸合成;三羧酸循环与戊糖磷酸途径是核心的能量代谢与还原力供应通路;丙氨酸、天冬氨酸和谷氨酸代谢,色氨酸代谢,乙醛酸和二羧酸代谢则与氨基酸代谢和糖异生相关。以上结果表明,饲粮中添加FLP引发了黄羽肉鸡脂肪合成、核酸合成和能量供应的代谢变化。
图4 差异代谢物KEGG通路富集分析气泡图

Terms:项目;-log10(P.value):-log10(P值) -log10(P-value);Count:计数;NES:标准化富集分数 normalized enrichment scores;Pyrimidine metabolism:嘧啶代谢;Purine metabolism:嘌呤代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸生物合成;Citrate cycle(TCA cycle):三羧酸循环(TCA循环);Fatty acid biosynthesis:饱和脂肪酸生物合成;Pentose phosphate pathway:戊糖磷酸途径;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;Glyoxylate and dicarboxylate metabolism:乙醛酸和二羧酸代谢;Tryptophan metabolism:色氨酸代谢。

Fig.4 Bubble plot of KEGG pathway enrichment analysis of differential metabolites

2.4.3 代谢网络分析

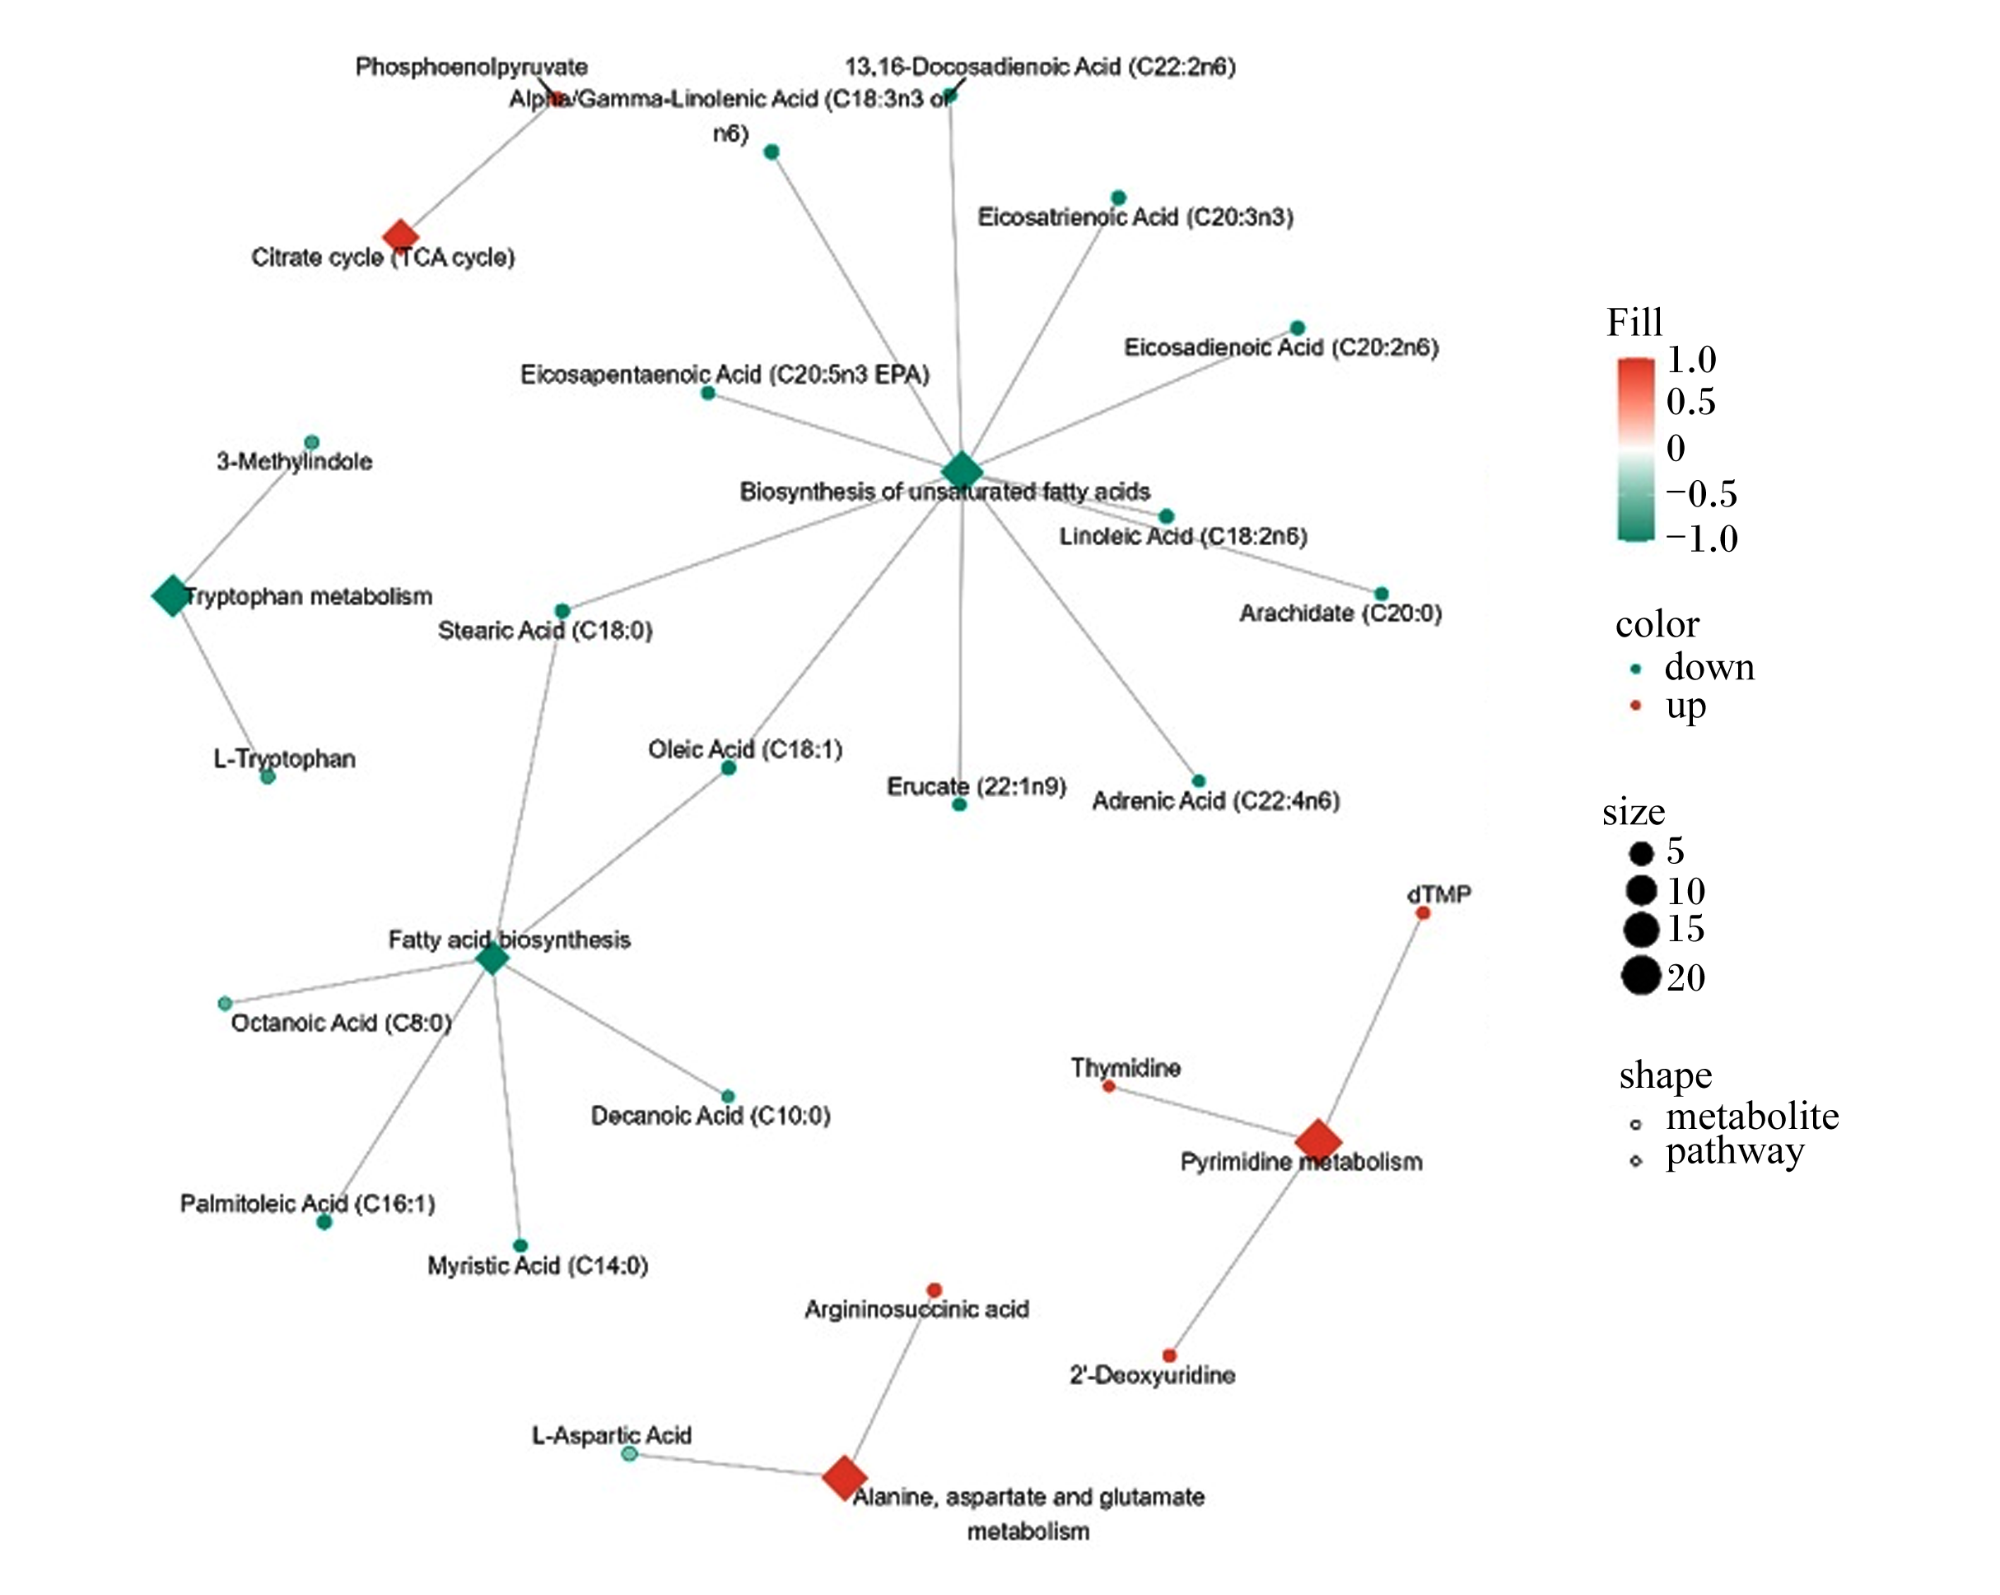
图5可知,基于代谢物富集分析结果,筛选出P<0.05的通路和通路中的差异代谢物构建代谢调控网络,主要参与肝脏脂质代谢的脂肪酸生物合成和不饱和脂肪酸生物合成呈下调趋势,共富集15种差异代谢物,包括辛酸(C8∶0)、癸酸(C10∶0)、肉豆蔻酸(C14∶0)、棕榈油酸(C16∶1)、油酸(C18∶1)、硬脂酸(C18∶0)、α-γ-亚麻酸(C18∶3n3)、13,16-二十二碳二烯酸(C22∶2n6)、二十碳三烯酸(C20∶3n3)、二十碳五烯酸(C20∶5n3,EPA)、二十碳二烯酸(C20∶2n6)、亚油酸(C18∶2n6)、花生酸(C20∶0)、芥酸(C22∶1n9)和肾上腺酸(C22∶4n6)。
图5 差异代谢物变化网络图

Fill:填充 color:颜色;down:下降;up:上升;size:大小;shape:形状;metabolite:代谢物;pathway:通路;Phosphoenolpyruvate:磷酸烯醇式丙酮酸;13,16-Docosadienoic Acid (C22∶2n6):13,16-二十二碳二烯酸(C22∶2n6);Eicosatrienoic Acid (C20∶3n3):二十碳三烯酸(C20∶3n3);Eicosadienoic Acid (C20∶2n6):二十碳二烯酸(C20∶2n6);Linoleic Acid (C18∶2n6):亚油酸(C18∶2n6);Arachidate (C20∶0):花生酸(C20∶0);Adrenic Acid (C22∶4n6):肾上腺酸(C22∶4n6);Erucate (22∶1n9):芥酸(22∶1n9);Oleic Acid (C18∶1):油酸(C18∶1);Stearic Acid (C18∶0):硬脂酸(C18∶0);Eicosapentaenoic Acid (C20∶5n3 EPA):二十碳五烯酸 EPA(C20∶5n3);Alpha/Gamma-Linolenic Acid (C18∶3n3 or n6):α/γ-亚麻酸(C18∶3n3/n6);Decanoic Acid (C10∶0):癸酸(C10∶0);Myristic Acid (C14∶0):肉豆蔻酸(C14∶0);Palmitoleic Acid (C16∶1):棕榈油酸(C16∶1);Octanoic Acid (C8∶0):辛酸(C8∶0);3-Methylindole:3-甲基吲哚;L-Tryptophan:L-色氨酸;L-Aspartic Acid:L-天冬氨酸;Argininosuccinic acid:精氨酰琥珀酸;2'-Deoxyuridine:2'-脱氧尿苷;Thymidine:胸苷;dTMP:脱氧胸苷酸 deoxythymidine acid。

Fig.5 Differential metabolite change network diagram

绿色表示与CON组相比,2.0%FLP组的代谢物下调,红色则表示代谢物上调。Green represented down-regulation of metabolites in the 2% FLP group compared to the CON group, while red represented up-regulation of metabolites.

2.5 FLP对黄羽肉鸡肝脏脂质代谢相关基因的影响

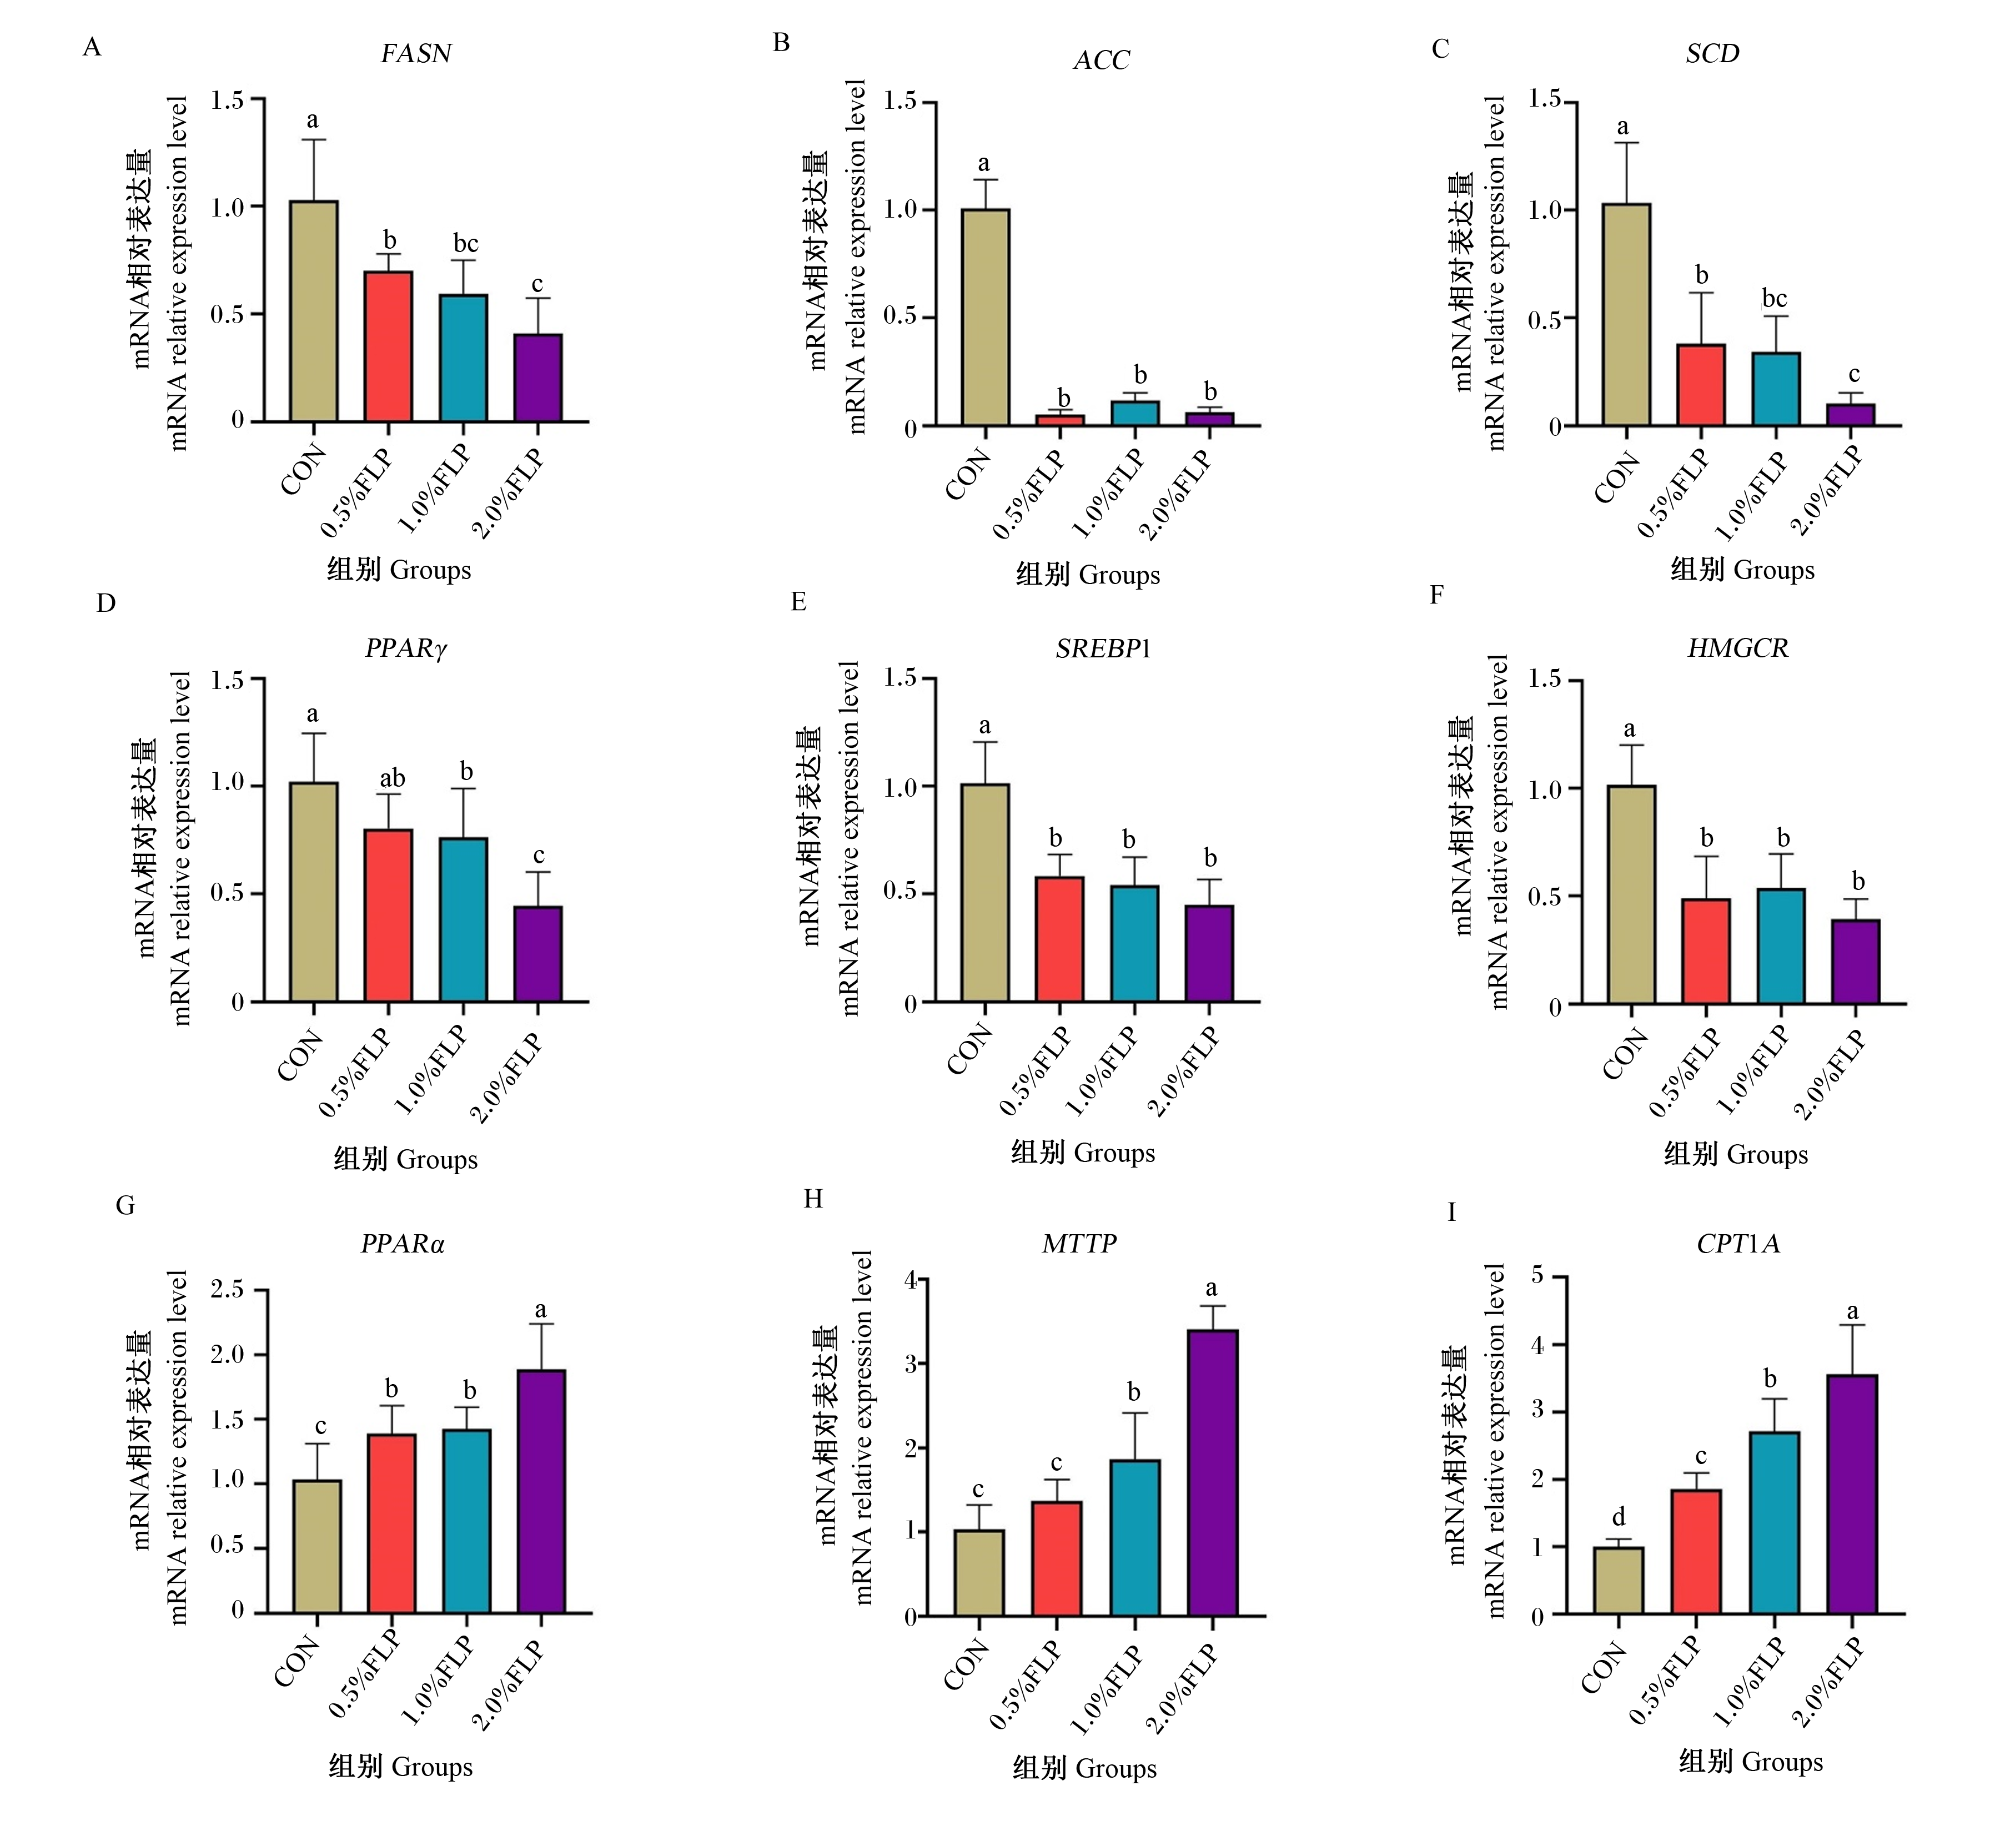
图6所示,与CON组相比,0.5%FLP组、1.0%FLP组和2.0%FLP组的肝脏中脂肪酸合酶(FASN)、乙酰辅酶A羧化酶(ACC)、固醇调节元件结合蛋白1(SREBP1)、硬脂酰辅酶A去饱和酶(SCD)和3-羟基-3-甲基戊二酸单酰辅酶A还原酶(HMGCR)的mRNA相对表达水平显著下降(P<0.05),1.0%FLP组和2.0%FLP组的肝脏中过氧化物酶增殖物激活受体γ(PPARγ)的mRNA相对表达水平显著下降(P<0.05),此外,2.0%FLP组的肝脏中FASNSCDPPARγ的mRNA相对表达水平显著低于0.5%FLP组(P<0.05)。与CON组相比,0.5%FLP组、1.0%FLP组和2.0%FLP组的肝脏中过氧化物酶增殖物激活受体α(PPARα)、微粒体甘油三酯转移蛋白(MTTP)和肉毒碱棕榈酰基转移酶1A(CPT1A)的mRNA相对表达水平显著升高(P<0.05)。此外,2.0%FLP组的肝脏中PPARαMTTPCPT1A的mRNA相对表达水平显著高于0.5%FLP组和1.0%FLP组(P<0.05)。
图6 FLP对黄羽肉鸡肝脏脂质代谢相关基因表达的影响

FASN:脂肪酸合酶 fatty acid synthase;ACC:乙酰辅酶A羧化酶 acetyl-CoA carboxylase;SCD:硬脂酰辅酶A去饱和酶 stearoyl-CoA desaturase;PPARγ:过氧化物酶增殖物激活受体γ peroxisome proliferator-activated receptor gamma;SREBP1:固醇调节元件结合蛋白1 sterol regulatory element-binding protein 1;HMGCR:3-羟基-3-甲基戊二酸单酰辅酶A还原酶3-hy-droxy-3-methyl glutaryl coenzyme A reductase;PPARα:过氧化物酶增殖物激活受体α peroxisome proliferation-activated receptor alpha;MTTP:微粒体甘油三酯转移蛋白 microsomal triglyceride transfer protein;CPT1A:肉毒碱棕榈酰基转移酶1A carnitine palmitoyltransferase 1A。图7同 the same as Fig.7

Fig.6 Effects of FLP on expression of lipid metabolism related genes in liver of yellow-feathered chickens

2.6 相关性分析

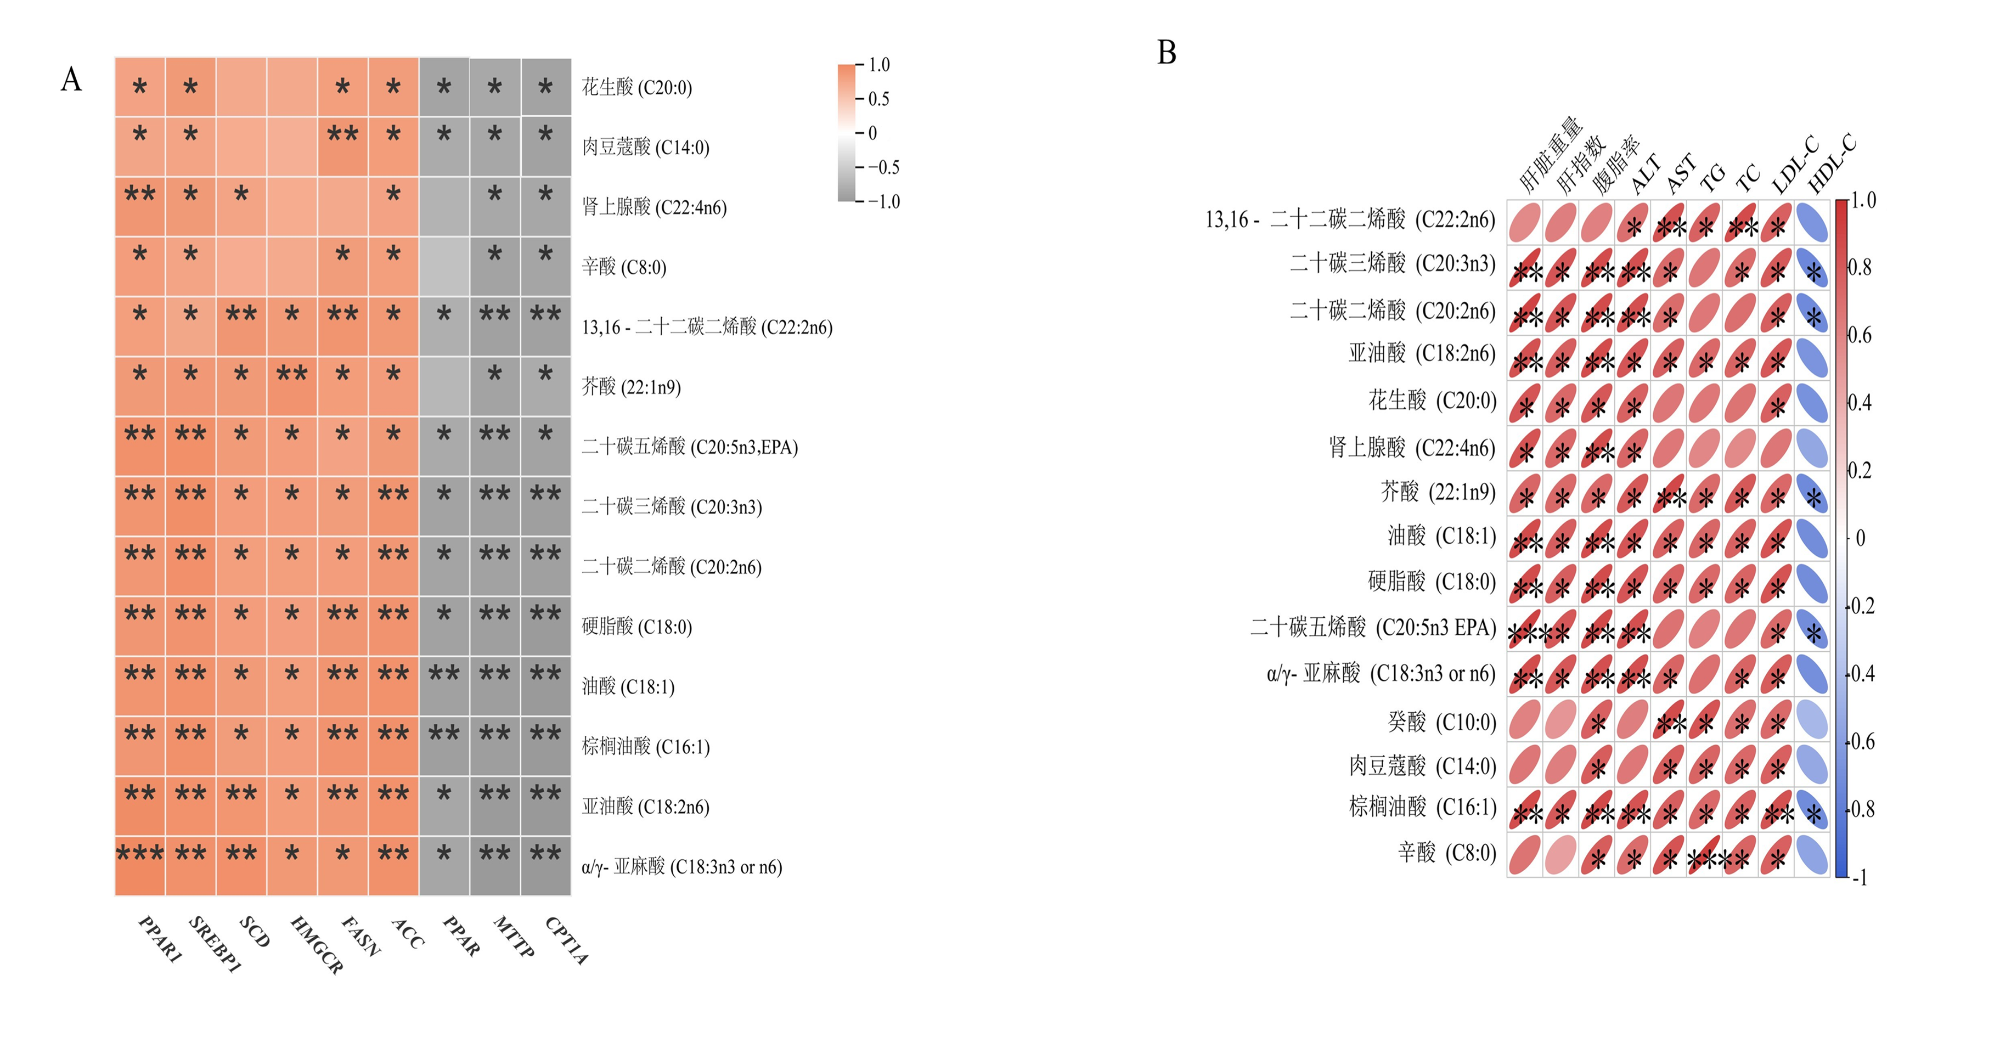
图7所示,对差异代谢物和脂质代谢相关基因表达指标进行Spearman相关性分析的结果显示,参与饱和脂肪酸和不饱和脂肪酸生物合成的差异代谢物与PPARαSREBP1、SCDHMGCRFASNACC呈正相关,而与PPARγMTTPCPT1A呈负相关,提示脂质代谢相关基因的表达引起代谢物的合成差异。对差异代谢物和表型指标进行Spearman相关性分析的结果显示,参与饱和脂肪酸和不饱和脂肪酸生物合成的差异代谢物与肝脏重量、肝脏指数、腹脂率、AST、ALT、TG、TC和LDL-C呈正相关,而与HDL-C呈负相关,提示FLP导致的差异代谢物进一步引起表型指标的变化,从而发挥改善肝脏脂质代谢的作用。
图7 相关性分析

ALT:谷丙转氨酶 alanine transaminase;AST:谷草转氨酶aspartate transaminase;TG:甘油三酯 triglycerides;TC:总胆固醇total cholesterol;LDL-C:低密度脂蛋白胆固醇low-density lipoprotein cholesterol ;HDL-C:高密度脂蛋白胆固醇 high-density lipoprotein cholesterol。

*和**表示相关。* and ** indicated correlated.

A:差异代谢物与脂质代谢相关基因表达的相关性 correlation between differential metabolites and expression of lipid metabolism related genes;B:差异代谢物与表型指标的相关性 correlation between differential metabolites and phenotypic parameters。

Fig.7 Correlation analysis

3 讨论

在减抗替抗的背景下,中草药越来越多的被用作饲料添加剂以改善畜禽的血脂指标[20],然而对于非药用部位作为饲料添加剂的研究较少。胡芦巴是一种药食同源的中草药,具有悠久的药用和食用历史。胡芦巴叶并非胡芦巴的药用部位,但具有产量高、成本低等优点。据报道,胡芦巴叶中尚富含绿原酸、芸香苷、槲皮素、山奈酚等多种具生物活性的黄酮及酚类衍生物[21]。本研究中观察到的FLP改善肝脏脂肪沉积、调节血脂及相关基因表达的效果,很可能与其富含的上述多酚类活性成分有关。例如,槲皮素和山奈酚已被证实可通过激活PPARα信号通路促进脂肪酸β氧化[22-23]。这与本研究代谢组学发现(脂肪酸生物合成通路下调)及PCR结果(PPARαCPT1AMTTP表达上调,ACCFASNSREBP1表达下调)高度吻合。因此,笔者推测FLP的降脂效果可能是其中的黄酮类和酚类活性物质通过协同调节脂肪合成与氧化分解发挥作用。本研究选用的试验动物为中速型黄羽肉鸡(出栏时间为60~100日龄),该品种肉品质优良,具有较好的生长性能,近几年市场占比连年增长[24]。通过在饲粮中添加不同剂量的FLP探究其对黄羽肉鸡肝脏脂质代谢的影响,为其在家禽养殖中的应用奠定基础。
禽类肝脏是脂肪合成和分解的主要器官,占脂质代谢的95%以上[25]。Kumar等[26]研究表明,0.5和1.0 g/kg胡芦巴水提物可显著降低高脂饮食诱导的肥胖大鼠的肝脏重量和腹膜后脂肪重量,且肝脏组织病理学显示胡芦巴水提物治疗21 d后降低了肥胖大鼠肝脏脂肪积累和脂肪变性。本研究中,饲粮中添加FLP显著降低了黄羽肉鸡肝脏重量、肝脏指数和腹脂率均,均以2.0%FLP组最低,病理学结果进一步显示饲粮中添加FLP减少了肝细胞内脂滴数量,这与Kumar等[26]对肥胖大鼠的研究结果一致。Sharma等[27]探讨了胡芦巴对高脂血症家兔的降血脂作用效果,结果表明胡芦巴在治疗4周后显著降低了高脂血症家兔的血清TG、TC和LDL-C含量,显著提高了HDL-C含量,这可能与胡芦巴中含有皂苷成分相关[28]。本研究中,饲粮中添加FLP显著降低了黄羽肉鸡血清TG、TC和LDL-C含量,且显著升高了HDL-C含量,说明FLP可以改善黄羽肉鸡血脂水平。尽管各FLP组血清ALT和AST活性较CON组显著降低,但均处于正常参考范围内[29-32],提示FLP在本试验剂量下未引起肝细胞损伤相关酶学异常,整体表现为良好的肝脏安全性。
本研究表明,饲粮中添加FLP显著降低了黄羽肉鸡的肝脏指数和肝脏重量,这一发现具有双重解读意义。一方面,肝脏作为机体代谢的核心器官,不仅负责脂质代谢,还承担着蛋白质代谢、糖代谢、解毒、分泌胆汁和免疫应答等关键生理功能。因此,肝脏重量的降低,在某些情况下可能预示着肝脏功能受损[33]。另一方面,肝脏重量降低是其有效促进肝脏脂肪减少、改善脂质代谢紊乱的积极表征[34]。本研究肝脏组织病理学结果显示,各FLP组肝细胞内脂滴体积减小、密度降低,这表明肝脏重量的减轻主要源于肝脏脂肪沉积的减少,而非肝脏实质细胞的流失。Raju等[35]研究发现,添加5%胡芦巴种子的肥胖大鼠的肝脏重量显著低于未给药肥胖大鼠的肝脏重量,且添加5%胡芦巴种子肥胖大鼠的肝脏TG含量显著降低,这与本研究结果一致。综上所述,本研究中肝脏重量和肝脏指数的下降,是FLP减少肝脏脂肪沉积的表现。由FLP对黄羽肉鸡的生长性能结果可知,饲粮中添加不同水平的FLP可不同程度地提高黄羽肉鸡的终末体重、ADG和ADFI,这与Yang等[36]的结果研究一致;但最终均未影响F/G,结合肝脏指标和脂质代谢指标的数据可知,饲粮中添加2.0%的FLP显著降低了肝脏指数、腹脂率及血清TG、TC和LDL-C含量,由此可知2.0%的添加水平对脂质代谢影响最佳,因此后续脂质代谢机制的研究选择该剂量下进行。
FLP干预后共鉴定出186种差异代谢物,如含量上调的3-羟基丁酸、肉碱和肌酸,含量下调的长链脂肪酸,如辛酸、硬脂酸、油酸和亚油酸等,这些差异代谢物大多与脂肪酸生物合成、不饱和脂肪酸生物合成、氨基酸代谢和嘧啶代谢等多种代谢途径密切相关。3-羟基丁酸是一种主要的体内酮体,也是肝脏中脂肪酸β氧化产生的特定代谢物[37]。脂肪酸β氧化的增强可减少肝脏脂肪沉积,改善脂质代谢[38]。Feng等[39]研究阿帕替尼的抗肿瘤作用中发现,肿瘤模型小鼠服用14 d阿帕替尼后诱导了肝脏PPARα的激活和3-羟基丁酸的产生,说明阿帕替尼可通过激活肿瘤小鼠肝脏PPARα信号通路,增加血清和肝脏中3-羟基丁酸含量,降低脂肪酸含量,有效促进小鼠对脂肪酸的利用。Guo等[40]研究表明,在高能量、低蛋白质饲粮诱导的蛋鸡脂肪肝出血综合征的血清代谢组学结果显示,模型组3-羟基丁酸含量较对照组显著降低,说明患有脂肪肝出血综合征的蛋鸡脂肪酸β氧化减少,导致蛋鸡肝脏脂肪沉积增加,与本研究的结果相似。本研究中,2.0%FLP组肝脏组织3-羟基丁酸含量显著高于CON组,表明添加FLP增强了脂肪酸β氧化,这有利于减少黄羽肉鸡肝脏脂肪沉积。肉碱是一种氨基酸衍生物,其在线粒体长链脂肪酸转运及抑制酰基辅酶A积累以保护细胞中发挥关键作用[41],从而改善肥胖及相关代谢紊乱[42]。Zhao等[43]研究发现,给予小鼠N,N,N-三甲基-5-氨基戊酸(TMAVA)可诱发肉碱缺乏,从而抑制肝脏脂肪酸氧化,增加游离脂肪酸的摄取与肝脏蓄积,最终加剧高脂饮食诱导的脂肪肝。还有一项研究表明,非酒精性脂肪性肝炎模型小鼠体内肉碱含量显著降低,木犀草素干预后通过逆转小鼠体内肉碱含量增强肝脏脂肪酸的β氧化,减轻了肝脏脂肪变性[44]。本试验中,饲粮中添加FLP后黄羽肉鸡肝脏组织肉碱含量显著上升,同时脂肪酸β氧化增强,这是FLP缓解脂肪沉积、促进脂肪分解的另一作用机制之一。此外,三羧酸循环和戊糖磷酸途径的增强,为黄羽肉鸡能量产生和生物合成提供了动力,这可能是2.0%FLP组黄羽肉鸡肝脏脂肪酸β氧化能力提升的直接动力基础。
FASN和ACC是脂肪酸合成的限速酶,可调节脂肪酸的合成[45]。饲粮中添加紫苏碱可显著降低高脂饮食组肉鸡肝脏FASNACC的表达,从而减少肝脏脂肪沉积[46]。SREBP1是参与脂肪合成的关键基因,并可通过调控脂肪合成相关基因的表达调节脂肪酸与胆固醇合成过程[47]。Cheng等[48]研究发现,补充小檗碱可显著降低脂肪肝出血综合征蛋鸡肝脏中SREBP1的表达,从而缓解肝脏脂肪沉积。SCD作为脂质代谢的关键调控因子,与脂肪肝疾病的发生与发展密切相关[49]。在脂肪肝出血综合征蛋鸡饲粮中添加厚朴酚可降低肝脏SCD的表达,从而抑制脂肪酸的从头合成,减少肝脏脂肪沉积[50]。过氧化物酶体增殖物激活受体(peroxisome proliferator-activated receptors,PPARs)是一类依赖配体激活的核转录因子,目前已知有3种亚型,即PPARα、PPARβ/δ和PPARγ[51]。PPARα通过调控脂肪酸转运及脂肪酸β氧化过程,有效调节肝脏脂质代谢稳态[52]。小豆蔻紫罗兰可显著升高老年蛋鸡肝脏中PPARα的表达,增强脂肪酸β氧化并抑制了TG合成,改善老年蛋鸡肝脏脂肪沉积[53]。PPARγ通过促进脂肪生成过程、调控脂肪细胞内的脂质蓄积,并调节脂肪细胞分泌蛋白及脂肪因子(如瘦素与脂联素)的表达,从而改善肝脏脂质代谢稳态[54]。研究发现,糖尿病小鼠口服甜菜碱后3周可显著降低糖尿病小鼠肝脏PPARγ的mRNA相对表达水平,从而降低脂肪生成基因的表达,减少肝脏脂肪生成[54]。HMGCR是胆固醇合成限速酶,有研究发现泌乳大鼠补充番茄红素后肝脏HMGCR的mRNA相对表达水平显著低于正常饮食组和高脂饮食组,表明补充番茄红素后泌乳大鼠肝脏合成胆固醇的能力下降[55]。本研究与上述研究结果相似,FLP通过下调脂肪酸合成关键基因FASNACCSCDSREBP1、PPARγ及胆固醇合成限速酶基因HMGCR的mRNA表达,能够减少脂肪酸的从头合成和胆固醇的合成以调节黄羽肉鸡肝脏脂质代谢。
MTTP通过极低密度脂蛋白合成参与肝脏脂质输出[56]。Cui等[34]研究发现,给高脂饮食诱导的脂肪肝出血综合征的蛋鸡补充红景天苷后,肝脏中MTTP的mRNA相对表达水平显著升高,且改善了蛋鸡的血脂指标,减轻了高脂饮食诱导的肝脏脂肪沉积。CPT1A负责将游离脂肪酸从细胞质转运到线粒体,从而实现脂肪酸β氧化[57]。Liao等[58]建立了非酒精性脂肪肝病小鼠模型以探究福莫诺丁对该疾病的作用机制,研究发现福莫诺丁干预后上调了小鼠肝脏CPT1A的表达,促进了小鼠脂肪酸β氧化,改善了肝脏脂质代谢。本研究中,饲粮中添加FLP同样上调了黄羽肉鸡脂肪酸β氧化关键基因PPARαCPT1A及脂质转运基因MTTP的表达,从而促进肝脏脂肪酸β氧化和转运,改善黄羽肉鸡肝脏脂质代谢。

4 结论

FLP对黄羽肉鸡的生长性能和肝脏的脂质代谢具有改善作用。FLP可通过下调脂肪合成基因(FASNSREBP1)和上调脂肪酸氧化基因(PPARαCPT1A)的表达,进而调控肝脏中脂肪酸和不饱和脂肪酸的生物合成,最终改善黄羽肉鸡的血脂含量和肝脏脂肪沉积。
[1]
LAN R X, WEI L L, YU H B, et al. Age-related changes in hepatic lipid metabolism and abdominal adipose deposition in yellow-feathered broilers aged from 1 to 56 days[J]. Animals, 2023, 13(24):3860.

DOI

[2]
SMINK W, GERRITS W J J, HOVENIER R, et al. Effect of dietary fat sources on fatty acid deposition and lipid metabolism in broiler chickens[J]. Poultry Science, 2010, 89(11):2432-2440.

DOI PMID

[3]
DEV K, BEGUM J, BISWAS A, et al. Dietary Lactobacillus acidophilus and mannan-oligosaccharides alter the lipid metabolism and health indices in broiler chickens[J]. Probiotics and Antimicrobial Proteins, 2021, 13(3):633-646.

DOI

[4]
DE SOUZA KHATLAB A, DEL VESCO A P, GASPARINO E, et al. Gender and age effects on the expression of genes related to lipid metabolism in broiler’s liver[J]. Czech Journal of Animal Science, 2018, 63(3):103-109.

DOI

[5]
SU Y, HUANG P, WU Z Y, et al. Effect of dietary supplementation with sanguinarine on meat quality and lipid metabolism of broilers[J]. Poultry Science, 2024, 103(8):103925.

DOI

[6]
GU T T, DUAN M C, LIU J Y, et al. Effects of tributyrin supplementation on liver fat deposition,lipid levels and lipid metabolism-related gene expression in broiler chickens[J]. Genes, 2022, 13(12):2219.

DOI

[7]
章蓓雯, 李鸿喜, 翁成桢, 等. 基于网络药理学和试验验证分析鬼针草治疗鸡细菌性腹泻的作用机制[J]. 畜牧兽医学报, 2025, 56(11):5683-5696.

DOI

ZHANG B W, LI H X, WENG C Z, et al. The mechanism of Bidens pilosa L. in the treatment of bacterial diarrhea in poultry based on network pharmacological analysis and experimental verification[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(11):5683-5696. (in Chinese)

[8]
SHI X, MIYAKAWA T, NAKAMURA A, et al. Engineering a short-chain dehydrogenase/reductase for the stereoselective production of (2S,3R,4S)-4-hydroxyisoleucine with three asymmetric centers[J]. Scientific Reports, 2017, 7(1):13703.

DOI PMID

[9]
AASIM M, BALOCH F S, NADEEM M A, et al. Fenugreek (Trigonella foenum-graecum L.):an underutilized edible plant of modern world[M]//OZTURK M,HAKEEM K R,ASHRAF M,et al.Global perspectives on underutilized crops. Cham: Springer, 2018:381-408.

[10]
MEHRAFARIN A, REZAZADEH S H, NAGHDI BADI H, et al. A review on biology,cultivation and biotechnology of fenugreek (Trigonella foenum-graecum L.) as a valuable medicinal plant and multipurpose[J]. Journal of Medicinal Plants, 2011, 10(37):6-24.

[11]
AKHLAGHI N, NAJAFPOUR-DARZI G. Phytochemical analysis,antioxidant activity,and pancreatic lipase inhibitory effect of ethanolic extract of Trigonella foenumgraceum L. leaves[J]. Biocatalysis and Agricultural Biotechnology, 2021, 32:101961.

DOI

[12]
BAKHTIAR Z, HASSANDOKHT M, NAGHAVI M R, et al. Nutritional value,phytochemical composition,and antioxidant potential of Iranian fenugreeks for food applications[J]. Scientific Reports, 2024, 14(1):21166.

DOI

[13]
崔艺燕, 余苗, 宋敏, 等. 发酵桑叶对肥育猪血浆和肝脏代谢组学的影响[J]. 动物营养学报, 2025, 37(9):6241-6253.

DOI

CUI Y Y, YU M, SONG M, et al. Effects of fermented mulberry leaves on plasma and liver metabonomics of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2025, 37(9):6241-6253. (in Chinese)

DOI

[14]
XIANG Q Q, HU S Y, LIGABA-OSENA A, et al. Seasonal variation in transcriptomic profiling of Tetrastigma hemsleyanum fully developed tuberous roots enriches candidate genes in essential metabolic pathways and phytohormone signaling[J]. Frontiers in Plant Science, 2021, 12:659645.

DOI

[15]
SCHOU C, KOLÖREN Z, SENDKER J, et al. Odontites linkii subsp. cyprius ethanolic extract indicated in vitro anti-Acanthamoeba effect[J]. Microorganisms, 2024, 12(11):2303.

DOI

[16]
高磊燕, 包颖, 李海英, 等. 复合植物提取物对萧山鸡生长性能、血清生化指标和肠道健康的影响[J]. 动物营养学报, 2025, 37(8):5250-5263.

DOI

GAO L Y, BAO Y, LI H Y, et al. Effects of compound plant extract on growth performance,serum biochemical indices and intestinal health of Xiaoshan chickens[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):5250-5263. (in Chinese)

[17]
凌晨涛, 陈芳, 梁余妙, 等. 橄榄粕对灵山香鸡生长性能、肌肉风味及肉品质的影响[J/OL]. 饲料工业, 2025:1-11(2025-09-12)[2025-12-08]. https://link.cnki.net/urlid/21.1169.S.20250912.1001.002.html.

LING C T, CHEN F, LIANG Y M, et al. Effect of olive meal on growth performance,muscle flavor,and meat quality of Lingshan Xiang chickens[J/OL]. Feed Industry, 2025:1-11(2025-09-12)[2025-12-08]. https://link.cnki.net/urlid/21.1169.S.20250912.1001.002.html. (in Chinese)

[18]
YE Z Q, QIN Y Z, ZHANG H J, et al. Effects of pectic oligosaccharide on growth performance,organ indexes and intestinal health in broilers exposed to aflatoxin B1[J]. Poultry Science, 2025, 104(11):105668.

DOI

[19]
王浩轩, 高金稔, 张迦, 等. 壳寡糖缓解热应激肉鸡肝脏损伤的作用研究[J]. 动物营养学报, 2025, 37(11):7534-7546.

DOI

WANG H X, GAO J R, ZHANG J, et al. Study on effects of chitosan oligosaccharides in alleviating liver injury in heat-stressed broilers[J]. Chinese Journal of Animal Nutrition, 2025, 37(11):7534-7546. (in Chinese)

DOI

[20]
刘泽青, 耿怡雯, 朱龙龙, 等. 发酵中草药饲料添加剂在畜禽生产中的研究应用进展[J]. 畜牧兽医学报, 2024, 55(10):4250-4262.

DOI

LIU Z Q, GENG Y W, ZHU L L, et al. Progress in research and application of fermented Chinese herbal feed additives in livestock and poultry production[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(10):4250-4262. (in Chinese)

DOI

[21]
SINGH P, VISHWAKARMA S P, SINGH R L. Antioxidant,oxidative DNA damage protective and antimicrobial activities of the plant Trigonella foenum-graecum[J]. Journal of the Science of Food and Agriculture, 2014, 94(12):2497-2504.

DOI

[22]
JIANG L, YI R, CHEN H, et al. Quercetin alleviates metabolic-associated fatty liver disease by tuning hepatic lipid metabolism,oxidative stress and inflammation[J]. Animal Biotechnology, 2025, 36(1):2442351.

DOI

[23]
CHANG C J, TZENG T F, LIOU S S, et al. Kaempferol regulates the lipid-profile in high-fat diet-fed rats through an increase in hepatic PPARα levels[J]. Planta Medica, 2011, 77(17):1876-1882.

DOI PMID

[24]
徐军, 屠云洁, 卢永胜, 等. 四种不同中速型黄羽肉鸡杂交配套效果研究[J]. 中国畜禽种业, 2024, 20(8):40-45.

XU J, TU Y J, LU Y S, et al. Study on the mating effect of four different medium-speed yellow-feathered broilers[J]. The Chinese Livestock and Poultry Breeding, 2024, 20(8):40-45. (in Chinese)

[25]
PIRANY N, BAKRANI BALANI A, HASSANPOUR H, et al. Differential expression of genes implicated in liver lipid metabolism in broiler chickens differing in weight[J]. British Poultry Science, 2020, 61(1):10-16.

DOI PMID

[26]
KUMAR P, BHANDARI U, JAMADAGNI S. Fenugreek seed extract inhibit fat accumulation and ameliorates dyslipidemia in high fat diet-induced obese rats[J]. BioMed Research International, 2014, 2014(1):606021.

[27]
SHARMA M S, CHOUDHARY P R. Hypolipidemic effect of fenugreek seeds and its comparison with atorvastatin on experimentally induced hyperlipidemia[J]. Journal of the College of Physicians and Surgeons Pakistan, 2014, 24(8):539-542.

[28]
SAUVAIRE Y, RIBES G, BACCOU J C, et al. Implication of steroid saponins and sapogenins in the hypocholesterolemic effect of fenugreek[J]. Lipids, 1991, 26(3):191-197.

DOI PMID

[29]
KESHTKARAN M, HASSANPOUR S, ASADOLLAHI K P, et al. Effects of in ovo injection of the L-carnosine on physiological indexes of neonatal broiler chicken[J]. Poultry Science, 2024, 103(3):103380.

DOI

[30]
FATHI M, ZARRINKAVYANI K, BIRANVAND Z, et al. Effects of cinnamon nanoparticles produced with ultrasonic waves on growth performance,antioxidant status,and hemato-biochemical metabolites of broiler chickens[J]. Poultry Science, 2025, 104(10):105615.

DOI

[31]
BAHRAMPOUR K, AFZALI N, HOSSEINI-VASHAN S J. Arginine amino acid,nano particles of zinc oxide,and stock density:effect on growth performance,intestinal morphology,blood indices,and meat quality in broiler chickens[J]. Poultry Science, 2026, 105(1):106148.

DOI

[32]
WANG W J, SHI Y, QIU T X, et al. Modified rougan decoction alleviates lipopolysaccharide-enrofloxacin-induced hepatotoxicity via activating the Nrf2/ARE pathway in chicken[J]. Poultry Science, 2023, 102(3):102404.

DOI

[33]
唐美文, 李维, 李萧佳, 等. 氯化亚锡对雏鸡肝脏氧化损伤的影响[J]. 湖南畜牧兽医, 2024(4):42-44.

TANG M W, LI W, LI X J, et al. Effects of stannous chloride on oxidative damage in chicken liver[J]. Hunan Journal of Animal Science & Veterinary Medicine, 2024(4):42-44. (in Chinese)

[34]
CUI Z F, JIN N N, AMEVOR F K, et al. Dietary supplementation of salidroside alleviates liver lipid metabolism disorder and inflammatory response to promote hepatocyte regeneration via PI3K/AKT/Gsk3-β pathway[J]. Poultry Science, 2022, 101(9):102034.

DOI

[35]
RAJU J, BIRD R P. Alleviation of hepatic steatosis accompanied by modulation of plasma and liver TNF-α levels by Trigonella foenum graecum (fenugreek) seeds in Zucker obese (fa/fa) rats[J]. International Journal of Obesity, 2006, 30(8):1298-1307.

DOI

[36]
YANG L, CHEN L, ZHENG K, et al. Effects of fenugreek seed extracts on growth performance and intestinal health of broilers[J]. Poultry Science, 2022, 101(7):101939.

DOI

[37]
CHEN G Q, WU Q. Microbial production and applications of chiral hydroxyalkanoates[J]. Applied Microbiology and Biotechnology, 2005, 67(5):592-599.

DOI

[38]
LI J M, ZHANG Z, KONG A D, et al. Dietary L-carnitine regulates liver lipid metabolism via simultaneously activating fatty acid β-oxidation and suppressing endoplasmic reticulum stress in large yellow croaker fed with high-fat diets[J]. British Journal of Nutrition, 2023, 129(1):29-40.

DOI

[39]
FENG S Q, WANG H, WANG Y, et al. Apatinib induces 3-hydroxybutyric acid production in the liver of mice by peroxisome proliferator-activated receptor α activation to aid its antitumor effect[J]. Cancer Science, 2019, 110(10):3328-3339.

DOI PMID

[40]
GUO L Y, KUANG J, ZHUANG Y, et al. Serum metabolomic profiling to reveal potential biomarkers for the diagnosis of fatty liver hemorrhagic syndrome in laying hens[J]. Frontiers in Physiology, 2021, 12:590638.

DOI

[41]
GNONI A, LONGO S, GNONI G V, et al. Carnitine in human muscle bioenergetics:can carnitine supplementation improve physical exercise?[J]. Molecules, 2020, 25(1):182.

DOI

[42]
AMIN K A, NAGY M A. Effect of carnitine and herbal mixture extract on obesity induced by high fat diet in rats[J]. Diabetology & Metabolic Syndrome, 2009, 1(1):17.

[43]
ZHAO M M, ZHAO L, XIONG X L, et al. TMAVA,a metabolite of intestinal microbes,is increased in plasma from patients with liver steatosis,inhibits γ-butyrobetaine hydroxylase,and exacerbates fatty liver in mice[J]. Gastroenterology, 2020, 158(8):2266-2281.e27.

DOI

[44]
GUO W, LUO L X, MENG Y, et al. Luteolin alleviates methionine-choline-deficient diet-induced non-alcoholic steatohepatitis by modulating host serum metabolome and gut microbiome[J]. Frontiers in Nutrition, 2022, 9:936237.

DOI

[45]
PAUL B, LEWINSKA M, ANDERSEN J B. Lipid alterations in chronic liver disease and liver cancer[J]. JHEP Reports, 2022, 4(6):100479.

DOI

[46]
XIAO Y, JIA M T, JIANG T Y, et al. Dietary supplementation with perillartine ameliorates lipid metabolism disorder induced by a high-fat diet in broiler chickens[J]. Biochemical and Biophysical Research Communications, 2022, 625:66-74.

DOI PMID

[47]
LI C L, ZHANG L L, QIU Z D, et al. Key molecules of fatty acid metabolism in gastric cancer[J]. Biomolecules, 2022, 12(5):706.

DOI

[48]
CHENG X Y, HU Y, KUANG J, et al. Berberine alleviates high-energy and low-protein diet-induced fatty liver hemorrhagic syndrome in laying hens:insights from microbiome and metabolomics[J]. Poultry Science, 2024, 103(8):103968.

DOI

[49]
ZHU Y L, MENG L L, MA J H, et al. Loss of LBP triggers lipid metabolic disorder through H3K27 acetylation-mediated C/EBPβ-SCD activation in non-alcoholic fatty liver disease[J]. Zoological Research, 2024, 45(1):79-94.

[50]
CHU Y, ZHENG Y Z, LI Y Y, et al. Dietary supplementation of magnolol alleviates fatty liver hemorrhage syndrome in post peak Xinhua laying hens via regulation of liver lipid metabolism[J]. Poultry Science, 2024, 103(3):103378.

DOI

[51]
WAHLI W, MICHALIK L. PPARs at the crossroads of lipid signaling and inflammation[J]. Trends in Endocrinology & Metabolism, 2012, 23(7):351-363.

[52]
PEREZ V M, GABELL J, BEHRENS M, et al. Deletion of fatty acid transport protein 2 (FATP2) in the mouse liver changes the metabolic landscape by increasing the expression of PPARα-regulated genes[J]. The Journal of Biological Chemistry, 2020, 295(17):5737-5750.

DOI

[53]
YAN M K, CONG X, WANG H, et al. Dietary Se-enrich Cardamine violifolia supplementation decreases lipid deposition and improves antioxidant status in the liver of aging laying hens[J]. Poultry Science, 2025, 104(1):104620.

DOI

[54]
PARK M H, KIM D H. Betaine suppresses lipid accumulation in liver:inhibition of FoxO6 and PPARγ interaction[J]. Journal of Medicinal Food, 2024, 27(12):1231-1242.

DOI

[55]
CAO C Y, SUN S S, LI J B, et al. Lycopene modulates lipid metabolism in rats and their offspring under a high-fat diet[J]. Food & Function, 2021, 12(19):8960-8975.

[56]
IPSEN D H, LYKKESFELDT J, TVEDEN-NYBORG P. Molecular mechanisms of hepatic lipid accumulation in non-alcoholic fatty liver disease[J]. Cellular and Molecular Life Sciences, 2018, 75(18):3313-3327.

DOI PMID

[57]
HAO F Q, TIAN M M, ZHANG X B, et al. Butyrate enhances CPT1A activity to promote fatty acid oxidation and iTreg differentiation[J]. Proceedings of the National Academy of Sciences, 2021, 118(22):e2014681118.

[58]
LIAO J B, XIE X H, WANG N, et al. Formononetin promotes fatty acid β-oxidation to treat non-alcoholic steatohepatitis through SIRT1/PGC-1α/PPARα pathway[J]. Phytomedicine, 2024, 124:155285.

DOI

Outlines

/