RESEARCH PAPER

Study on Optimization of Microbial Agents for Degradation of Anti-Nutritional Factors by Mixed Solid-State Fermentation of Whole-Plant Forage Rapeseed and Rapeseed Meal

  • ZHANG Lin ,
  • WANG Tao ,
  • ZHONG Wei ,
  • WU Yuyao ,
  • CHEN Jianjun ,
  • ZHANG Yunyi ,
  • DAI Wendong , *
Expand
  • Rapeseed Research Institute, Guizhou Academy of Agricultural Sciences, Guiyang 550007, China
* professor, E-mail:

Received date: 2026-01-23

  Online published: 2026-06-13

Abstract

This study aimed to determine the optimal microbial agent and substrate moisture content for mixed solid-state fermentation of whole-plant forage rapeseed and rapeseed meal, in order to optimize fermentation process conditions, thereby effectively degrading anti-nutritional factors in the fermentation substrate and improving its nutritional quality. A full factorial experiment with two factors was conducted. Four levels of microbial agents (agent A, agent B, agent C and blank control) and three levels of substrate moisture content (55%, 60% and 65%). A total of 12 groups were designed, including 9 experimental groups and 3 control groups. Experimental group 1: agent A + 55% moisture; group 2: agent A + 60% moisture; group 3: agent A + 65% moisture; group 4: agent B + 55% moisture; group 5: agent B + 60% moisture; group 6: agent B + 65% moisture; group 7: agent C + 55% moisture; group 8: agent C + 60% moisture; group 9: agent C + 65% moisture. The three control groups had no microbial agent, with substrate moisture contents of 55% (CK1), 60% (CK2) and 65% (CK3), respectively. Each group had three replicates, and the weight of fermentation substrate per replicate was set as 1 kg. Fermentation was carried out at room temperature for 30 days. The results showed as follows: except for experimental group 5, crude protein content after fermentation in the other experimental groups was significantly or extremely significantly higher than that before fermentation (P<0.05 or P<0.01); the increase rate of crude protein in experimental group 9 was extremely significantly higher than that in all other groups (P<0.01). The phytic acid content after fermentation in experimental groups 8 and 9 was extremely significantly lower than that before fermentation (P<0.01), while that in the other experimental groups was extremely significantly higher than that before fermentation (P<0.01); among them, experimental group 9 had the highest phytic acid degradation rate (93.94%). After fermentation, the tannin content in all experimental groups was extremely significantly lower than that before fermentation (P<0.01); under different substrate moisture contents, the average tannin degradation rates of adding microbial agents A, B and C were 71.12%, 74.04% and 67.66%, respectively, which were extremely significantly higher than that of no addition (P<0.01). Except for experimental group 9, the glucosinolate content after fermentation in the other experimental groups was significantly or extremely significantly lower than that before fermentation (P<0.05 or P<0.01); under different substrate moisture contents, the average glucosinolate degradation rates of adding microbial agents A, B and C were 32.65%, 33.10% and 26.18%, respectively, which were extremely significantly higher than that of no addition (P<0.01). The microbial agent factor alone could explain 90.40%, 98.20%, 97.50% and 93.20% of the variation in crude protein, phytic acid, tannin and glucosinolate contents, respectively, with the largest proportion of variation explained and the strongest statistical evidence. The interaction between microbial agent and substrate moisture content contributed the most to the variation in crude fiber content, explaining 52.30% of the variation. In conclusion, under the conditions of this experiment, the fermentation process using microbial agent C with a substrate moisture content of 65% is optimal, showing the best improvement effect on the nutritional quality of the mixed solid-state fermentation substrate of whole-plant forage rapeseed and rapeseed meal.

Cite this article

ZHANG Lin , WANG Tao , ZHONG Wei , WU Yuyao , CHEN Jianjun , ZHANG Yunyi , DAI Wendong . Study on Optimization of Microbial Agents for Degradation of Anti-Nutritional Factors by Mixed Solid-State Fermentation of Whole-Plant Forage Rapeseed and Rapeseed Meal[J]. Chinese Journal of Animal Nutrition, 2026 , 38(6) : 4689 -4703 . DOI: 10.12418/CJAN2026.375

随着畜牧业的快速发展,当前我国动物饲料供给面临多方面压力,主要表现在饲料资源短缺,受极端气候、地缘冲突与市场环境等外部因素影响大,同时存在产业可持续发展受限等问题[1]。通过本课题组前期的研究发现,盛花期至终花期的全株青绿饲料油菜具有粗蛋白质及生物产量高等特点[2],其粗蛋白质含量高达20%以上,生物产量达75~105 t/hm2;其必需氨基酸占总氨基酸的37%~40%[3],必需氨基酸指数相对较高;其富含赖氨酸、蛋氨酸、苏氨酸等必需氨基酸以及含硫氨基酸,作为饲料能够有效促进畜禽蛋白质的合成及生长发育[4],增强免疫力[5]。然而油菜秸秆粗纤维含量相对较高,这严重影响畜禽对其他营养物质的消化吸收[6-7]。而菜籽粕(rapeseed meal,RSM)同样具有粗蛋白质含量高(35%~45%)[8-9],氨基酸组成均衡合理等特点[10-11];但由于其含有大量植酸、单宁、硫苷等抗营养因子[12-13],严重制约其作为优质高蛋白质源饲料的利用,导致菜籽粕的综合利用率和附加值较低[14]。菜籽粕中的植酸会导致单胃动物矿物质缺乏,骨骼发育迟缓,降低蛋白质与氨基酸的消化利用,从而导致生长性能下降[15]。单宁具有强烈的苦涩味,不仅影响畜禽适口性,而且会与蛋白质结合,降低畜禽对蛋白质的消化率[16-17];同时,单宁不利于畜禽的肠道健康,易引发腹泻和炎症等,降低畜禽采食量,影响其生长发育[18]。硫苷自身无毒,但在芥子酶的作用下会发生水解,产生异硫氰酸酯(ITC)、噁唑烷硫酮(OZT)及腈类化合物等有毒物质[19],影响机体甲状腺形态和功能,损害肝脏和肾脏[20],同时引发胃肠炎和腹泻,导致畜禽采食量下降,生长育肥及繁殖性能受到抑制[21]
微生物固态发酵是一种降低菜籽粕中抗营养因子含量的有效途径[22]。虽然目前对菜籽粕这单一底物进行微生物发酵降解抗营养因子的研究报道相对较多,但针对全株饲料油菜(whole-plant forage rapeseed,WFR)与菜籽粕的多底物混合发酵制备动物饲料的相关研究鲜有报道。郝怡宁等[23]利用枯草芽孢杆菌(Bacillus subtilis)、雅致放射毛霉混菌在32 ℃下对双低菜籽粕进行静态发酵5 d,其中硫苷、植酸、粗纤维降解率分别达45.26%、41.37%、31.16%。利用少孢根霉对菜籽粕进行固态发酵后,硫苷、植酸、粗纤维含量分别下降了43.1%、42.4%、25.5%,并且提升了饲料中蛋白质含量[24]。Dastar等[25]利用乳酸杆菌、Bacillus subtilis、黑曲霉菌(Aspergillus niger)对菜籽粕在30 ℃、60%含水量下发酵25 d,其粗蛋白质含量提升了7.25%,粗纤维、植酸及单宁等酚类物质含量分别降低了47.32%、82.85%、58.52%,开展饲喂试验发现发酵菜籽粕能够有效提升肉鸡营养物质回肠消化率,降低血清中胆固醇含量。Czech等[26]在饲粮中添加8%发酵菜籽粕,发现断奶仔猪粗蛋白质、粗脂肪、粗纤维的表观消化率和回肠消化率显著高于饲喂普通饲料的对照组。
全株饲料油菜与菜籽粕的混合底物为微生物固态发酵提供了充足的碳源以及氮源,为发酵创造了良好的基础条件。研究发现,Bacillus subtilis、植物乳杆菌(Lactobacillus plantarum)、酿酒酵母(Saccharomyces cerevisiae)和Aspergillus niger对植酸、单宁、硫苷等抗营养因子的降解有显著效果[27-29]。考虑到盛花期至终花期饲料油菜植株纤维素含量相对较高,纤维素酶能够作用于纤维素中的1,4-β-D-葡萄糖苷键,对粗纤维降解有一定效果[30]。因此,本研究选择Bacillus subtilis CMCC B 63501、Lactobacillus plantarum ATCC 14917、Saccharomyces cerevisiae CICC 1392、Aspergillus niger CMCC F 98003以及纤维素酶这5种菌剂或酶剂。本研究旨在通过全株饲料油菜与菜籽粕混合固态发酵,分析菌剂及底物含水量对营养物质与抗营养因子含量变化的影响,以优化发酵工艺条件,从而实现降低发酵底物中抗营养因子含量和改善发酵饲料营养品质的目的。为更加高效的利用菜籽粕这类农业副产物,使其能够作为一类新型发酵饲料以减少养殖业对玉米粉、豆粕、麦麸等传统饲料的依赖,缓解供求压力。

1 材料与方法

1.1 试验材料

全株饲料油菜:牲饲2号饲料油菜种子由贵州省农业科学院油菜研究所提供,其具有粗蛋白质含量高及生物产量高等特点,适合用作青绿饲料油菜。在盛花期至终花期,将饲料油菜植株地面部分进行刈割,收获新鲜油菜植株,利用秸秆粉碎机将其粉碎至1~2 mm初段后备用。
菜籽粕:采购自贵州油研农业科技有限公司,利用相同粉碎机将块状菜籽粕粉碎,过18目筛网后备用。
发酵菌剂:Bacillus subtilis CMCC B 63501、Lactobacillus plantarum ATCC 14917、Saccharomyces cerevisiae CICC 1392、Aspergillus niger CMCC F 98003购于沧州夏盛酶生物技术有限公司,纤维素酶购于北京索莱宝科技有限公司。Bacillus subtilis CMCC B 63501、Lactobacillus plantarum ATCC 14917、Aspergillus niger CMCC F 98003的活菌数≥1.0×10¹⁰ CFU/g,Saccharomyces cerevisiae CICC 1392的活菌数≥2.0×10¹⁰ CFU/g,纤维素酶活性为3 U/mg。

1.2 试验设计

本研究通过利用全株饲料油菜与菜籽粕进行混合固态发酵,设置双因子的全因素试验,发酵菌剂设定菌剂A、菌剂B、菌剂C和空白4个水平,底物含水量设定55%、60%、65% 3个水平。共有12个组别,包括9个试验组和3个对照组,试验1组:菌剂A+底物含水量55%;试验2组:菌剂A+底物含水量60%;试验3组:菌剂A+底物含水量65%;试验4组:菌剂B+底物含水量55%;试验5组:菌剂B+底物含水量60%;试验6组:菌剂B+底物含水量65%;试验7组:菌剂C+底物含水量55%;试验8组:菌剂C+底物含水量60%;试验9组:菌剂C+底物含水量65%;3个对照组是空白菌剂,底物含水量分别为55%(CK1组)、60%(CK2组)和65%(CK3组)。每组设置3个重复,每个重复的发酵底物重量设定为1 kg,试验设计分组见表1。发酵底物装入30 cm×40 cm青贮发酵袋,常温环境下发酵30 d。
表1 全因素试验设计分组

Table 1 Grouping of full-factorial experimental design

项目
Items
底物含水量 Substrate moisture content/%
55 60 65
菌剂A Microbial agent A 试验1组 试验2组 试验3组
菌剂B Microbial agent B 试验4组 试验5组 试验6组
菌剂C Microbial agent C 试验7组 试验8组 试验9组
空白 Blank CK1组 CK2组 CK3组

1.3 饲料油菜栽培管理

饲料油菜品种选择牲饲2号,2023年9月下旬播种,播种地点位于贵州省黔南州长顺县草业所基地内。采用撒播的方式,播种密度为667 m2播种3万株。每亩土地施底肥[氮(N)∶磷(P)∶钾(K)=15∶15∶15]100 kg,出苗后4~5叶期每亩追施尿素7 kg,其他管理与保护措施按照油菜常规栽培管理方式进行。

1.4 全株饲料油菜与菜籽粕含水量测定

在饲料油菜刈割制备发酵底物前1~2 d,先测定其植株含水量。采用多点取样计算平均值的方法,在田块中3个不同点位,每个点位随机取2~3株长势均匀一致且具有代表性的油菜植株。对3个点位的油菜植株分别称重并记录,分别对应3个重复数据。植株鲜样在105 ℃下杀青20 min,65 ℃烘干至恒重,计算3个重复的平均含水量。
取3份质地均匀一致的菜籽粕样品,称重后用同样的烘干方式对3份菜籽粕进行烘干处理,计算菜籽粕的平均含水量。

1.5 复合微生物发酵菌剂配制与激活

以每1 kg发酵底物中Bacillus subtilis CMCC B 63501、Lactobacillus plantarum ATCC 14917、Saccharomyces cerevisiae CICC 1392、Aspergillus niger CMCC F 98003、纤维素酶的添加量为例。菌剂A配制方法:分别称量Bacillus subtilis CMCC B 63501冻干粉1 g、Lactobacillus plantarum ATCC 14917冻干粉1 g、Saccharomyces cerevisiae CICC 1392冻干粉0.5 g、Aspergillus niger CMCC F 98003冻干粉1 g,加入红糖50 g,用纯水定容到50 mL,搅拌均匀后静置8 h。为研究Bacillus subtilisAspergillus niger对发酵的影响,菌剂B在菌剂A的基础上减少这2种菌剂。菌剂B配制方法:分别称量Lactobacillus plantarum ATCC 14917冻干粉1 g、Saccharomyces cerevisiae CICC 1392冻干粉0.5 g,加入红糖20 g,用纯水定容到50 mL,搅拌均匀后静置8 h。为研究纤维素酶对发酵的影响,菌剂C在菌剂A的基础上加入纤维素酶。菌剂C配制方法:分别称量Bacillus subtilis CMCC B 63501冻干粉1 g、Lactobacillus plantarum ATCC 14917冻干粉1 g、Saccharomyces cerevisiae CICC 1392冻干粉0.5 g、Aspergillus niger CMCC F 98003冻干粉1 g,加入红糖50 g,用纯水定容到50 mL,搅拌均匀后静置8 h,随后加入纤维素酶粉剂0.1 g,再次搅拌均匀后备用。

1.6 发酵底物重量计算

根据全株饲料油菜与菜籽粕含水量测定结果,按照各组发酵底物含水量设定,计算各组的底物添加量。经过测定,全株饲料油菜平均含水量为82.18%,菜籽粕平均含水量为3.20%。每组发酵底物重量设定为1 kg,全株饲料油菜鲜重(kg)记为X,菜籽粕鲜重(kg)记为Y,全株饲料油菜含水量(%)记为WX(测定值),菜籽粕含水量(%)记为WY(测定值)。由于每组发酵底物重量设定为1 kg,即X+Y=1。55%含水量发酵底物中全株饲料油菜的添加量:X=(55-WY)/(WX-WY);60%含水量发酵底物中全株饲料油菜的添加量:X=(60-WY)/(WX-WY);65%含水量发酵底物中全株饲料油菜的添加量:X=(65-WY)/(WX-WY)。根据上述公式计算,全株饲料油菜与菜籽粕在55%含水量条件下的添加量分别为0.65、0.35 kg;在60%含水量条件下的添加量分别为0.72、0.28 kg;在65%含水量条件下的添加量分别为0.78、0.22 kg。

1.7 全株饲料油菜与菜籽粕混合固态发酵

根据试验设计,各组对应的复合发酵菌剂与发酵底物如表2所示,每组3个重复。分别称量对应重量的发酵底物后混合均匀,将复合发酵菌剂喷洒在发酵底物上(对照组不添加发酵菌剂),再次搅拌均匀。装入30 cm×40 cm青贮发酵袋,利用真空包装机真空密封处理后,常温环境下发酵30 d。
表2 各组全株饲料油菜与菜籽粕的添加量及对应菌剂

Table 2 Addition levels of WFR and RSM, and corresponding microbial agents in each group

组别 Groups 全株饲料油菜 WFR/kg 菜籽粕 RSM/kg 菌剂 Microbial agent
试验1组 Experimental group 1 0.65 0.35 A
试验2组 Experimental group 2 0.72 0.28 A
试验3组 Experimental group 3 0.78 0.22 A
试验4组 Experimental group 4 0.65 0.35 B
试验5组 Experimental group 5 0.72 0.28 B
试验6组 Experimental group 6 0.78 0.22 B
试验7组 Experimental group 7 0.65 0.35 C
试验8组 Experimental group 8 0.72 0.28 C
试验9组 Experimental group 9 0.78 0.22 C
对照1组 CK1 group 0.65 0.35
对照2组 CK2 group 0.72 0.28
对照3组 CK3 group 0.78 0.22

1.8 发酵底物的营养物质与抗营养因子含量检测

分别在发酵前和发酵结束后,送样检测各组底物的粗蛋白质、粗纤维、植酸、单宁、硫苷含量。粗蛋白质含量的检测按照《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)进行,粗纤维含量的检测按照《饲料中粗纤维的含量测定》(GB/T 6434—2022)进行,植酸的检测参照食品中植酸含量的检测方法(GB 5009.153—2016)进行,单宁含量的检测按照《饲料中单宁的测定 分光光度法》(GB/T 27985—2011)进行,硫苷含量的检测采用氯化钯比色法。计算营养物质与抗营养因子含量变化率,计算公式如下:
粗蛋白质提升率(%)=100×(发酵后粗蛋白质含量-发酵前粗蛋白质含量)/发酵前粗蛋白质含量;
粗纤维降解率(%)=100×(发酵前粗纤维含量-发酵后粗纤维含量)/发酵前粗纤维含量;
植酸降解率(%)=100×(发酵前植酸含量-发酵后植酸含量)/发酵前植酸含量;
单宁降解率(%)=100×(发酵前单宁含量-发酵后单宁含量)/发酵前单宁含量;
硫苷降解率(%)=100×(发酵前硫苷含量-发酵后硫苷含量)/发酵前硫苷含量。

1.9 试验数据处理

通过Excel 2010对各组营养物质与抗营养因子含量的检测数据做初步整理,用SPSS 27统计软件对各组发酵前后的差异进行t检验,对组间差异进行单因素方差分析(one-way ANOVA)并结合最小显著差异法(LSD)进行多重比较,并针对菌剂和底物含水量进行双因素方差分析(two-way ANOVA),最后采用GraphPad Prism 8软件进行数据可视化处理。结果数据以“平均值±标准差”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 混合固态发酵对全株饲料油菜与菜籽粕的营养物质和抗营养因子含量的影响

表3可知,除了试验5组外,其余各试验组发酵后粗蛋白质含量显著或者极显著高于发酵前(P<0.05或P<0.01);CK2组发酵后粗蛋白质含量显著高于发酵前(P<0.05)。试验3组发酵后粗纤维含量显著低于发酵前(P<0.05),试验7组发酵后粗纤维含量显著高于发酵前(P<0.05),其余各组发酵前后粗纤维含量无显著差异(P>0.05)。试验8组和9组的发酵后植酸含量极显著低于发酵前(P<0.01),其余试验组发酵后植酸含量极显著高于发酵前(P<0.01);各对照组发酵前后植酸含量均无显著差异(P>0.05)。各试验组发酵后单宁含量极显著低于发酵前(P<0.01),各对照组发酵前后单宁含量均无显著差异(P>0.05)。除了试验9组外,其余各试验组发酵后硫苷含量显著或者极显著低于发酵前(P<0.05或P<0.01);CK1组和CK3组发酵后硫苷含量显著高于发酵前(P<0.05),CK2组发酵前后无显著差异(P>0.05)。
表3 混合固态发酵对全株饲料油菜与菜籽粕的营养物质和抗营养因子含量的影响

Table 3 Effects of mixed solid-state fermentation on contents of nutrients and anti-nutritional factors in WFR and RSM

组别
Groups
发酵
Fermentation
粗蛋白质
CP/%
粗纤维
CF/%
植酸
PA/(g/kg)
单宁
TA/(mg/kg)
硫苷
GLS/(μmol/g)

试验1组
Experimental group 1
30.08±0.20b 13.39±0.35 9.61±0.34B 4.37±0.25A 14.27±0.19A
34.36±0.29a 14.86±0.29 25.18±0.26A 1.17±0.13B 8.75±0.18B

试验2组
Experimental group 2
28.81±0.48b 14.22±0.27 8.81±0.20B 4.09±0.14A 14.39±0.34A
33.45±0.29a 15.40±0.31 26.40±0.30A 1.15±0.19B 9.15±0.26B

试验3组
Experimental group 3
27.40±0.37B 15.13±0.05a 7.92±0.38B 3.78±0.21A 14.53±0.30a
35.04±0.35A 13.36±0.21b 23.81±0.31A 1.20±0.15B 11.21±0.19b

试验4组
Experimental group 4
30.08±0.35B 13.39±0.61 9.61±0.59B 4.37±0.25A 14.27±0.19A
36.07±0.31A 14.66±0.63 27.31±0.74A 1.29±0.19B 9.47±0.29B

试验5组
Experimental group 5
28.81±0.48 14.22±0.27 8.81±0.21B 4.09±0.14A 14.39±0.34a
30.63±0.32 12.29±0.33 18.01±0.20A 0.95±0.08B 9.10±0.31b

试验6组
Experimental group 6
27.40±0.37B 15.13±0.05 7.92±0.38B 3.78±0.21A 14.53±0.30a
32.04±0.34A 15.33±0.22 18.17±0.23A 0.95±0.06B 10.33±0.24b

试验7组
Experimental group 7
30.08±0.20b 13.39±0.35b 9.61±0.34B 4.37±0.25A 14.27±0.19A
36.41±0.79a 16.21±0.38a 14.36±0.39A 0.75±0.05B 7.29±0.28B

试验8组
Experimental group 8
28.81±0.48b 14.22±0.27 8.81±0.20A 4.09±0.14A 14.39±0.34a
34.34±0.32a 15.52±0.54 0.99±0.12B 2.27±0.11B 11.02±0.30b

试验9组
Experimental group 9
27.40±0.37B 15.13±0.05 7.92±0.38A 3.78±0.21A 14.53±0.30
38.21±0.35A 16.36±0.58 0.48±0.04B 0.92±0.07B 13.63±0.50

对照1组
CK1 group
30.08±0.21 13.39±0.35 9.61±0.34 4.37±0.25 14.27±0.19b
30.98±0.66 14.27±0.39 10.60±0.41 4.88±0.07 15.79±0.50a

对照2组
CK2 group
28.81±0.48b 14.22±0.27 8.81±0.20 4.09±0.14 14.39±0.34
30.14±0.43a 14.97±0.56 8.92±0.28 4.84±0.19 15.05±0.48

对照3组
CK3 group
27.40±0.37 15.13±0.05 7.92±0.38 3.78±0.21 14.53±0.30b
28.04±0.48 15.97±0.47 8.87±0.36 4.72±0.38 16.02±0.46a

发酵前后数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。

Values before and after fermentation with no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01).

2.2 混合固态发酵对全株饲料油菜与菜籽粕的营养物质和抗营养因子含量变化率的影响

表4可知,与对照组相比,除了试验5组外,其余各试验组粗蛋白质提升率均极显著提高(P<0.01);其中,试验9组粗蛋白质提升率极显著高于其余各组(P<0.01)。与对照组相比,试验3组和5组粗纤维降解率极显著提高(P<0.01),试验7组显著降低(P<0.05)。与对照组相比,试验8组和9组植酸降解率极显著提高(P<0.01),其余试验组极显著降低(P<0.01)。与对照组相比,各试验组单宁降解率均极显著提高(P<0.01)。与对照组相比,各试验组硫苷降解率均显著或者极显著提高(P<0.05或P<0.01)。
表4 混合固态发酵对全株饲料油菜与菜籽粕的营养物质和抗营养因子含量变化率的影响

Table 4 Effects of mixed solid-state fermentation on change rates of nutrient and anti-nutritional factor contents in WFR and RSM %

组别
Groups
粗蛋白质提升率
Increase
rate of CP
粗纤维降解率
Degradation
rate of CF
植酸降解率
Degradation
rate of PA
单宁降解率
Degradation
rate of TA
硫苷降解率
Degradation
rate of GLS
试验1组
Experimental group 1
14.23±1.73Cd -11.11±2.88BCbc -163.03±12.43Ef 73.32±1.48Aab 38.66±1.23ABb
试验2组
Experimental group 2
16.15±2.40Ccd -8.39±2.40BCb -199.99±8.56Fg 72.04±3.70Aab 36.41±1.31ABCb
试验3组
Experimental group 3
27.73±2.98Bb 11.69±1.35Aa -202.32±18.30Fg 67.31±2.23Ab 22.72±2.89Cc
试验4组
Experimental group 4
19.89±1.07BCcd -9.76±5.25BCb -185.27±13.90EFg 70.61±3.84Aab 33.58±2.58BCb
试验5组
Experimental group 5
6.36±2.42De 13.39±3.85Aa -104.61±6.54Dd 76.83±1.24Aab 37.20±3.68ABCb
试验6组
Experimental group 6
16.76±0.87Ccd -1.33±1.83ABb -130.17±8.43De 74.85±1.13Aab 28.81±2.89BCbc
试验7组
Experimental group 7
21.05±2.98BCc -21.26±5.12Cc -49.79±5.97Cc 82.79±0.39Aa 48.87±2.17Aa
试验8组
Experimental group 8
19.24±2.43Ccd -9.37±6.00BCb 88.81±1.11Aa 44.50±0.75Bc 23.24±3.77Cc
试验9组
Experimental group 9
39.45±1.24Aa -8.15±3.88BCb 93.94±0.80Aa 75.66±3.43Aab 6.19±5.24Dd
对照1组 CK1 group 2.96±1.50De -6.84±4.86BCb -10.41±2.73Bb -12.77±8.22Cd -10.57±2.04Ee
对照2组 CK2 group 4.67±0.56De -5.27±1.96BCb -1.44±4.23Bb -19.18±7.91Cd -4.86±5.83DEe
对照3组 CK3 group 2.16±1.18De -5.61±3.12BCb -12.65±8.48Bb -11.35±5.16Cd -10.24±1.93Ee

同列数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。表5表6同。

In the same column, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as Table 5 and Table 6.

2.3 菌剂对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量变化率的影响

表5可知,不同底物含水量时,添加菌剂A、B、C的平均粗蛋白质提升率分别为19.41%、14.39%、26.56%;与空白添加相比,添加菌剂C能极显著提高粗蛋白质提升率(P<0.01),添加菌剂A能显著提高粗蛋白质提升率(P<0.05)。与空白添加相比,添加菌剂对粗纤维降解率无显著影响(P>0.05)。与空白添加相比,添加菌剂A和B的植酸降解率显著降低(P<0.05);仅在底物含水量为60%和65%时,添加菌剂C可显著增加植酸降解率(P<0.05,表4)。不同底物含水量时,添加菌剂A、B、C的平均单宁降解率分别为71.12%、74.04%、67.66%,均极显著高于空白添加(P<0.01)。不同底物含水量时,添加菌剂A、B、C的平均硫苷降解率分别为32.65%、33.10%、26.18%,均极显著高于空白添加(P<0.01)。
表5 菌剂对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量变化率的影响

Table 5 Effects of microbial agents on change rates of nutrient and anti-nutritional factor contents in fermented WFR and RSM %

项目
Items
粗蛋白质提升率
Increase
rate of CP
粗纤维降解率
Degradation
rate of CF
植酸降解率
Degradation
rate of PA
单宁降解率
Degradation
rate of TA
硫苷降解率
Degradation
rate of GLS
菌剂A Microbial agent A 19.41±4.22ABa -2.60±7.19 -188.45±12.73Cb 71.12±1.94Aa 32.65±4.98Aa
菌剂B Microbial agent B 14.39±4.09ABab 0.76±6.77 -140.02±23.79BCb 74.04±1.83Aa 33.10±2.43Aa
菌剂C Microbial agent C 26.56±6.39Aa -12.93±4.18 44.31±47.08Aa 67.66±11.70Aa 26.18±12.45Aa
空白 Blank 3.27±0.74Bb -5.91±0.48 -8.17±3.42ABa -14.44±2.41Bb -8.56±1.85Bb

2.4 底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量变化率的影响

表6可知,在底物含水量为55%、60%、65%时,全株饲料油菜与菜籽粕添加不同菌剂发酵后的平均粗蛋白质提升率分别为18.39%、13.87%、28.10%,均显著或者极显著高于空白添加(P<0.05或P<0.01)。在底物含水量为55%、60%、65%时,全株饲料油菜与菜籽粕添加不同菌剂发酵后的平均粗纤维降解率和植酸降解率均与空白添加无显著差异(P>0.05)。在底物含水量为55%、60%、65%时,全株饲料油菜与菜籽粕添加不同菌剂发酵后的平均单宁降解率分别为75.51%、64.38%、72.93%,均显著或者极显著高于空白添加(P<0.05或P<0.01)。在底物含水量为55%、60%、65%时,全株饲料油菜与菜籽粕添加不同菌剂发酵后的平均硫苷降解率分别为40.41%、32.20%、19.32%,均显著或者极显著高于空白添加(P<0.05或P<0.01)。
表6 底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量变化率的影响

Table 6 Effects of substrate moisture contents on change rates of nutrient and anti-nutritional factor contents in fermented WFR and RSM %

项目
Items
粗蛋白质提升率
Increase
rate of CP
粗纤维降解率
Degradation
rate of CF
植酸降解率
Degradation
rate of PA
单宁降解率
Degradation
rate of TA
硫苷降解率
Degradation
rate of GLS
55%底物含水量 55% substrate moisture content
菌剂A、B、C的平均值
Average value of
microbial agents A, B and C
18.39±2.11a -13.84±3.64 -147.32±44.49 75.51±3.75a 40.41±4.49a
空白 Blank 2.96±1.50b -6.84±4.87 -10.42±2.73 -12.77±8.23b -10.57±2.05b
60%底物含水量 60% substrate moisture content
菌剂A、B、C的平均值
Average value of
microbial agents A, B and C
13.87±0.56a -1.28±7.43 -71.78±84.85 64.38±10.04a 32.20±4.39A
空白 Blank 4.67±0.56b -5.27±1.96 -1.45±4.24 -19.18±7.91b -4.86±5.83B
65%底物含水量 65% substrate moisture content
菌剂A、B、C的平均值
Average value of
microbial agents A, B and C
28.10±6.50A 0.75±5.82 -78.70±88.74 72.93±2.35A 19.32±6.79a
空白 Blank 2.16±1.18B -5.62±3.12 -12.65±8.48 -11.35±5.16B -10.24±1.93b

2.5 菌剂与底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量的影响

表7可知,菌剂、底物含水量这2个因子及其交互作用对粗蛋白质、粗纤维、植酸、单宁、硫苷含量均有极显著影响(P<0.01)。发酵对粗蛋白质含量的影响中,各影响因子的ηp2值大小顺序依次为ηp2(M)>ηp2(M×W)>ηp2(W);其中ηp2(M)=0.94,说明菌剂因子解释了最大的变异,其独立贡献了90.40%,且统计证据最强(F=75.17,P<0.001),表明菌剂对粗蛋白质含量影响最为显著。发酵对粗纤维含量的影响中,各影响因子的ηp2值大小顺序依次为ηp2(M×W)>ηp2(M)>ηp2(W),说明最高的变异来源为菌剂与底物含水量的交互作用,交互作用单独解释了粗纤维含量52.30%的变异,而菌剂与底物含水量因子分别单独解释了46.60%、46.40%的变异,菌剂对粗纤维的优化降解效果不佳。发酵对植酸含量的影响中,各影响因子的ηp2值大小顺序依次为ηp2(M)>ηp2(M×W)>ηp2(W),说明最高的变异来源为菌剂,菌剂因子解释了植酸含量最大的变异,且独立解释了98.20%,统计证据最强(F=427.10,P<0.001),表明菌剂对植酸含量变化的影响显著强于其他2个因子。发酵对单宁含量的影响中,各影响因子的ηp2值大小顺序依次为:ηp2(M)>ηp2(M×W)>ηp2(W),说明最高的变异来源为菌剂,其单独贡献了单宁含量变化的97.50%,远高于底物含水量和交互作用产生的变异贡献,且统计证据最强(F=315.89,P<0.001),表明单宁含量变化受菌剂影响大于其他因素的影响。发酵对硫苷含量的影响中,各影响因子的ηp2值大小顺序依次为ηp2(M)>ηp2(M×W)>ηp2(W),说明最高的变异来源为菌剂,其对硫苷含量产生的变异贡献最大,单独解释了93.20%的变异,统计证据最强(F=110.20,P<0.001),表明菌剂对硫苷含量影响最显著。
表7 菌剂与底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量影响的双因素方差分析

Table 7 Two-way ANOVA of effects of microbial agents and substrate moisture contents on contents of nutrients and anti-nutritional factors in fermented WFR and RSM

因变量
Dependent
variables
变异来源
Sources of
variation
Ⅲ类平方和
Type Ⅲ sum of
squares
自由度
Degree of
freedom
均方
Mean square
F
F-value
P
P-value
偏eta方
ηp2/%


粗蛋白质 CP
M 2 581.66 3 860.55 75.17 <0.001 90.40
W 616.26 2 308.13 26.91 <0.001 69.20
M×W 749.13 6 124.85 10.90 <0.001 73.20
误差 Error 274.73 24 11.44


粗纤维 CF
M 922.07 3 307.36 6.97 0.002 46.60
W 915.43 2 457.71 10.38 <0.001 46.40
M×W 1 157.95 6 192.99 4.38 0.004 52.30
误差 Error 1 058.20 24 44.09


植酸 PA
M 322 048.65 3 107 349.55 427.10 <0.001 98.20
W 15 617.97 2 7 808.98 31.06 <0.001 72.10
M×W 37 593.45 6 6 265.57 24.92 <0.001 86.20
误差 Error 6 032.21 24 251.34


单宁 TA
M 49 263.04 3 16 421.01 315.89 <0.001 97.50
W 664.02 2 332.01 6.38 0.006 34.70
M×W 2 026.24 6 337.70 6.49 <0.001 61.90
误差 Error 1 247.58 24 51.98


硫苷 GLS
M 10 635.62 3 3 545.20 110.20 <0.001 93.20
W 1 586.63 2 793.31 24.66 <0.001 67.30
M×W 1 821.53 6 303.59 9.43 <0.001 70.20
误差 Error 772.06 24 32.17

M:菌剂因子 microbial agent factor;W:底物含水量因子 substrate moisture content factor;M×W:菌剂与底物含水量的交互作用 interaction between microbial agent and substrate moisture content;ηp2:因子对因变量变异的贡献大小 contribution of the factor to the variation of the dependent variable。

因此,除了对粗纤维含量以外,菌剂因子对其他营养物质和抗营养因子含量的影响均最为显著,表现为ηp2(M)>ηp2(M×W)>ηp2(W)。

2.6 菌剂与底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量交互作用的影响

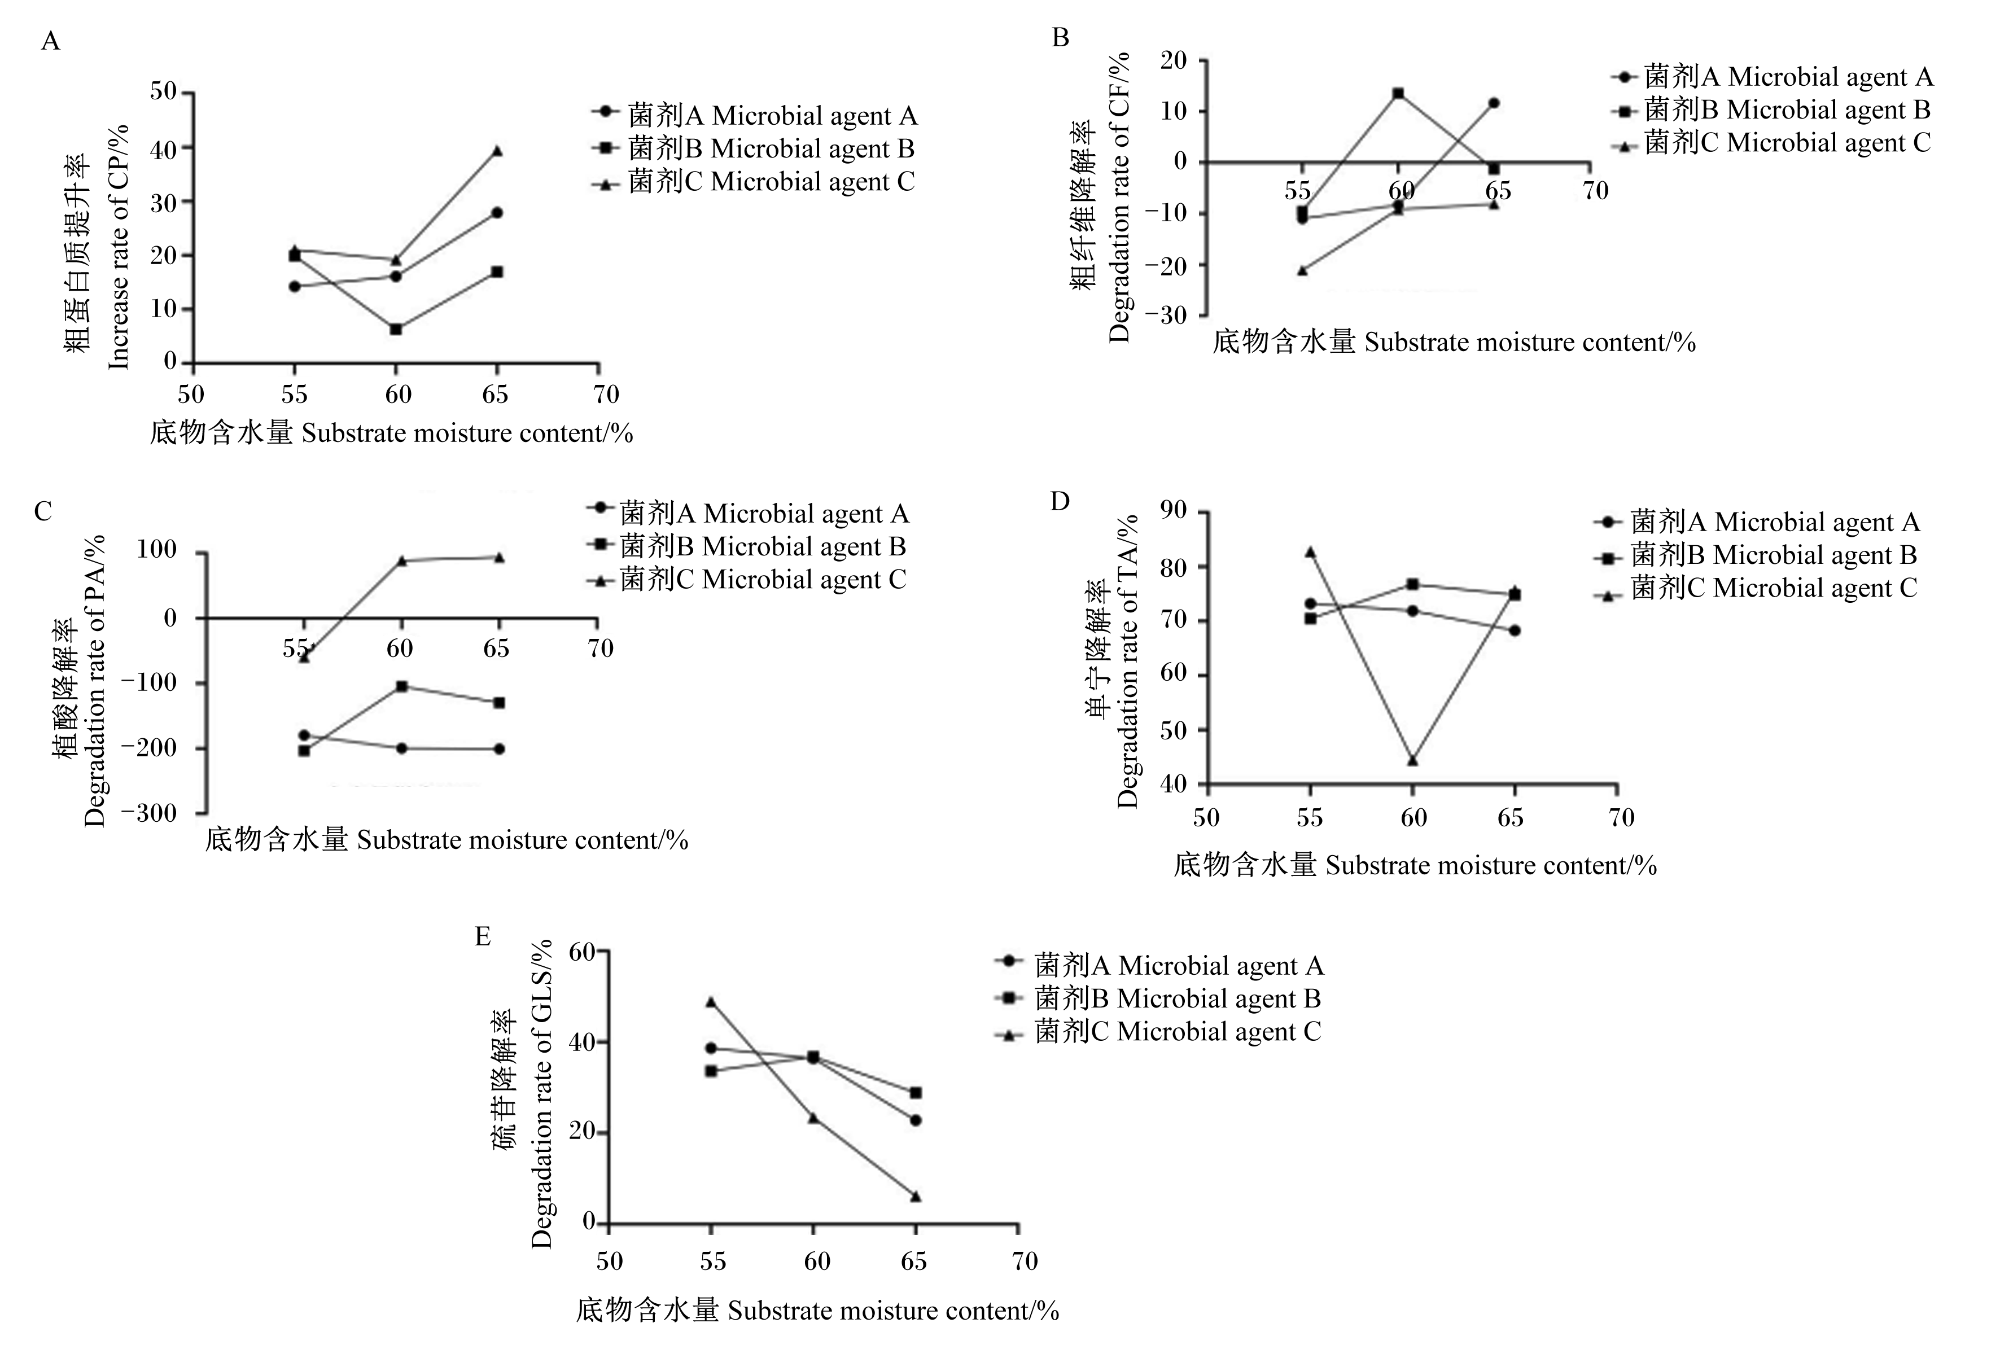
图1-A可知,随着底物含水量由55%增加到60%,粗蛋白质提升率未见明显变化;随着底物含水量由60%增加到65%,添加菌剂A、B、C的粗蛋白质提升率均明显提升。因粗纤维含量受到菌剂与底物含水量的交互作用影响最大,仅在底物含水量为60%添加菌剂B和底物含水量为65%添加菌剂A时粗纤维有一定程度的降解(图1-B)。由图1-C可知,仅在底物含水量为60%~65%添加菌剂C时植酸有一定程度的降解率,且其降解率超过88%。由图1-D可知,随着底物含水量由55%增加到65%,添加菌剂A、B的硫苷降解率未见明显变化,添加菌剂C的硫苷降解率呈现先降低后升高的情况。由图1-E可知,随着底物含水量由55%增加到60%,添加菌剂A、B的硫苷降解率未见明显变化,添加菌剂C的硫苷降解率明显降低;随着底物含水量由60%增加到65%,添加菌剂A、B、C的硫苷降解率均明显降低。
图1 菌剂与底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量交互作用影响的折线图

Fig.1 Line graph of interactive effects of microbial agents and substrate moisture contents on contents of nutrients and anti-nutritional factors in fermented WFR and RSM

3 讨论

3.1 混合固态发酵后全株饲料油菜与菜籽粕的粗蛋白质含量提升效果差异分析

本研究中,除了试验5组外,其余各试验组发酵后粗蛋白质含量显著或者极显著高于发酵前,其中,试验9组粗蛋白质提升率极显著高于其余各组;不同底物含水量时,在全株饲料油菜与菜籽粕添加菌剂A、B、C发酵后的平均粗蛋白质提升率分别为19.41%、14.39%、26.56%;与空白添加相比,全株饲料油菜与菜籽粕添加菌剂C能极显著提高发酵后的粗蛋白质提升率。可见,添加菌剂C对提高全株饲料油菜与菜籽粕粗蛋白质含量的效果最佳,菌剂A次之,菌剂B最差。这可能是由于菌剂C和A中加入了Bacillus subtilis以及Aspergillus niger,而Bacillus subtilisAspergillus niger在发酵过程中能够分泌大量蛋白酶,促进大分子蛋白质降解形成更容易被吸收的小分子多肽和氨基酸[31-32]。同时,随着植酸盐与蛋白质分子形成的复合物逐渐被分解,释放出部分游离氨基酸,提高了粗蛋白质含量[33-34]。由于Bacillus subtilis菌株自身含有蛋白质,在发酵过程中能够利用发酵底物提供的有机碳源和氮源进行大量扩增繁殖[35-36]。同时,在菌群发酵过程中可能会导致部分碳水化合物被分解形成二氧化碳和水蒸气逸散到空气中,减少干物质含量,从而增加粗蛋白质比例。菌剂C是在菌剂A的基础上加入了纤维素酶,并且Aspergillus niger同样能够分泌部分纤维素酶以及半纤维素酶[37]。其分泌的纤维酶虽然不能对细胞壁完全分解,但能够一定程度破坏细胞表层结构,释放部分被包裹的大分子蛋白质复合物[38],然后在蛋白酶作用下解离,形成小分子多肽和氨基酸,发酵产物的粗蛋白质含量提高。

3.2 混合固态发酵后全株饲料油菜与菜籽粕的粗纤维含量降解效果差异分析

本研究中,试验3组发酵后粗纤维含量显著低于发酵前,试验5组发酵后粗纤维含量数值上低于发酵前,但差异不显著,其余各组发酵前后粗纤维含量均呈现不同程度提升。粗纤维含量受到菌剂与底物含水量的交互作用影响最大,菌剂对粗纤维的优化降解效果不佳。虽然菌剂C中加入了部分纤维素酶,且Aspergillus niger在发酵过程中也能够释放部分纤维素酶与半纤维素酶,但是菌剂C对发酵底物中粗纤维的降解效果依然不佳。这可能是由于发酵底物中粗纤维主要来源于全株饲料油菜,而盛花期至终花期饲料油菜细胞壁木质纤维含量丰富,木质化程度高[39]。由纤维素、半纤维素、木质素、果胶形成的纤维复合体具有很强的稳定性,同时木质素通过化学键形成坚固的三维网状结构覆盖在纤维素、半纤维素外层[40-41]。单一的纤维素酶只对纤维素中的β-1,4糖苷键发生水解,而对覆盖在外层的木质素无任何作用。同时,木质素还能够对纤维素酶产生吸附作用,致使纤维素酶无法与纤维素直接接触发生水解,进而木质素起到了天然屏障的作用[42-43]。由此可见,单一的纤维素酶很难直接与内部纤维素接触发挥降解效果,可能需要配合果胶酶、木质素酶、半纤维素酶等协同发酵,才能对发酵底物中粗纤维进行有效降解。同时,由于纤维素酶的最适酶活温度在40~60 ℃[44],而由于考虑到本次研究要最大限度贴近实际生产应用情况,本次是采取常温(20~25 ℃)发酵的方式,这种发酵条件达不到纤维素酶的最适酶活温度,因此无法发挥其最佳酶活效力。由此推测,温度条件是限制纤维素酶对粗纤维有效降解的关键因素之一。由于Bacillus subtilisAspergillus niger等菌株在发酵过程中会分泌部分蛋白酶,这在一定程度降低了纤维素酶的酶活,最终也会影响其对纤维素的降解效果。

3.3 混合固态发酵后全株饲料油菜与菜籽粕的抗营养因子降解效果差异分析

本研究中,添加了菌剂C的试验8组和9组中,发酵后植酸降解率分别达到了88.81%、93.94%,极显著低于发酵前;其余试验组发酵后植酸含量极显著高于发酵前。这表明菌剂A、B对植酸降解效果不佳,而菌剂C在60%以上底物含水量时对植酸有显著降解作用。这可能是由于菌剂C中添加的纤维素酶能够一定程度地破坏细胞壁结构,使得植酸酶能够与内部被包裹的植酸盐复合物发生水解[45];而Aspergillus niger在发酵过程中也能够分泌出部分植酸酶等其他酶类,从而加速对植酸的降解作用[46]。而菌剂A中因为没有添加纤维素酶,导致发酵过程中Aspergillus niger分泌的植酸酶很难直接与植酸接触并对其水解。
本研究中,各试验组单宁降解率均极显著提高;不同底物含水量时,在全株饲料油菜与菜籽粕添加菌剂A、B、C发酵后的平均单宁降解率分别为71.12%、74.04%、67.66%,均极显著高于空白添加。这说明菌剂A、B、C对单宁降解均有一定效果,可能是由于Aspergillus niger在发酵过程中分泌的部分单宁酶能够特异性水解单宁分子[47],对单宁起到降解作用。
除了试验9组外,其余各试验组发酵后硫苷含量显著或者极显著低于发酵前,不同底物含水量时,在全株饲料油菜与菜籽粕添加菌剂A、B、C发酵后的平均硫苷降解率分别为32.65%、33.10%、26.18%,均极显著高于空白添加。这说明菌剂A、B、C对硫苷降解均有一定效果,这也可能是由于Aspergillus niger在发酵过程中能够产生硫苷酶对硫苷起到降解作用[48]。Deng等[49]利用Schizochytrium ATCC 20888对菜籽粕进行固态发酵,其中硫苷及其水解产物ITC、OZT降解率分别达到61.36%、55.47%、43.68%。Zhang等[50]利用Lactobacillus delbrueckiiBacillus subtilis对菜籽粕进行固态发酵,其中硫苷降解率达94.62%。二者的研究结果对硫苷的降解效果均优于本研究,可能是由于这些研究中的发酵底物只是单一的菜籽粕,其粗纤维含量远低于全株饲料油菜中粗纤维含量,由于发酵底物中不存在木质化纤维素的物理屏障阻碍,菌剂在发酵过程中分泌的纤维素酶、植酸酶、硫苷酶等系列降解酶能够直接作用于抗营养因子,因此对部分抗营养因子的降解效果优于本研究。

3.4 菌剂与底物含水量对发酵后全株饲料油菜与菜籽粕的营养物质和抗营养因子含量影响差异分析

本研究中,菌剂因子对粗蛋白质、植酸、单宁、硫苷含量的影响程度均大于底物含水量[ηp2(M)>ηp2(W)],其主效应最为强烈,菌剂与底物含水量的交互效应影响相对较小。菌剂因子分别能够单独解释粗蛋白质、植酸、单宁、硫苷含量变异的90.40%、98.20%、97.50%、93.20%。粗纤维含量受菌剂与底物含水量互作效应影响最大[ηp2(M×W)=52.30%],强于菌剂的主效应[ηp2(M)=46.60%]和底物含水量的主效应[ηp2(W)=46.40%],这表明菌剂与底物含水量因子之间存在较强的互作效应,两者相互影响。菌剂A、B分别在65%、60%底物含水量时对粗纤维降解效果最佳。其主要原因可能是本次选用的3种复合菌剂对全株饲料油菜与菜籽粕的粗纤维降解作用较弱。控制底物含水量是通过调节全株饲料油菜与菜籽粕的添加比例来实现,若全株饲料油菜添加比例越高(底物含水量越高),则底物粗纤维含量也就相对更高,而菌剂对较高比例的全株饲料油菜没有足够的降解效果,导致发酵后粗纤维含量受菌剂与底物含水量的互作效应影响较大,相较于菌剂对粗纤维含量影响的主效应更强。

4 结论

综上所述,在本试验条件下,底物含水量为65%时选用菌剂C作为最优发酵工艺条件;在该条件下全株饲料油菜与菜籽粕混合固态发酵底物营养品质得到显著改善,其中粗蛋白质提升率为39.45%,植酸、单宁、硫苷降解率分别达93.94%、75.66%和6.19%。通过全株饲料油菜与菜籽粕混合固态发酵的菌剂及底物含水量对营养物质和抗营养因子含量影响的分析研究,为发酵饲料在养殖行业应用提供参考。
[1]
刘帅. 大食物观视角下我国饲料粮进口依存度的统计分析及应对策略[J]. 中国饲料, 2024(18):165-168.

LIU S. Statistical analysis and response strategies of China’s feed grains import dependence from the perspective of the big food concept[J]. China Feed, 2024(18):165-168. (in Chinese)

[2]
张林, 陈燕萍, 王婧泽, 等. 饲料油菜与牧草的优势比较研究[J]. 耕作与栽培, 2021, 41(5):27-31.

ZHANG L, CHEN Y P, WANG J Z, et al. Comparison of advantages between forage rape and ryegrass as winter and spring green fodder[J]. Tillage and Cultivation, 2021, 41(5):27-31. (in Chinese)

[3]
刘萍, 张林, 王涛, 等. 饲料油菜粗蛋白含量及其氨基酸组成[J]. 草业科学, 2023, 40(12):3150-3162.

LIU P, ZHANG L, WANG T, et al. The study on the crude protein content and amino acid composition in brassica napus feed[J]. Pratacultural Science, 2023, 40(12):3150-3162. (in Chinese)

[4]
WEN Y M, WANG Y X, ZHANG X Y, et al. Impacts of feeding different lipid sources on growth performance,thigh meat quality characteristics,dietary amino acid metabolism and small intestine development in landes geese[J]. Poultry Science, 2026, 105(1):106128.

DOI

[5]
杨洁, 冯帆, 李昊, 等. 饲料油菜对滩羊瘤胃发酵、营养物质消化及肉品质的影响[J]. 草业科学, 2025, 42(8):2073-2088.

YANG J, FENG F, LI H, et al. Effects of feed rape on rumen fermentation,nutrient digestion,and meat quality in Tan sheep[J]. Pratacultural Science, 2025, 42(8):2073-2088. (in Chinese)

[6]
DORADO-MONTENEGRO S, HABIBI M F, GERRITS W J J, et al. Effect of adding soluble viscous fibers to diets containing coarse and finely ground insoluble fibers on digesta transit behavior and nutrient digestibility in broiler chickens[J]. Poultry Science, 2024, 103(4):103487.

DOI

[7]
LANNUZEL C, VEERSMA R J, VAN ERVEN G, et al. Fibre-rich ingredients differing in physicochemical properties modulate digesta transit and digestion kinetics in pigs[J]. Animal, 2025, 19(4):101473.

DOI

[8]
帅常奕. 菜籽粕发酵酶解工艺参数研究及其对猪的营养价值评定[D].硕士学位论文. 雅安: 四川农业大学, 2023.

SHUAI C Y. Technological parameters of rapeseed meal fermentation with enzymolysis and its evaluation of nutritional value for pigs[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[9]
刘英豪, 陈星, 李晓珍, 等. 蛋白质饲料资源在饲粮豆粕减量替代中的应用[J]. 饲料工业, 2024, 45(22):34-40.

LIU Y H, CHEN X, LI X Z, et al. The application of protein feed resources in reducing and replacing feed soybean meal[J]. Feed Industry, 2024, 45(22):34-40. (in Chinese)

[10]
韦富康, 叶发明, 王志康, 等. 双低菜籽粕替代低蛋白日粮中豆粕对育肥猪生长性能和血清生化参数的影响[J]. 饲料工业, 2025, 46(14):39-43.

WEI F K, YE F M, WANG Z K, et al. Effects of replacing soybean meal in low-protein diets with double-low rapeseed meal on growth performance and serum biochemical parameters of finishing pigs[J]. Feed Industry, 2025, 46(14):39-43. (in Chinese)

[11]
张璐瑶, 范志勇, 王永伟, 等. 棉籽粕和菜籽粕内源抗营养因子脱除技术研究进展[J]. 饲料研究, 2024, 47(2):133-138.

ZHANG L Y, FAN Z Y, WANG Y W, et al. Research progress on removal technology of endogenous anti-nutritional factors in cottonseed meal and rapeseed meal[J]. Feed Research, 2024, 47(2):133-138. (in Chinese)

[12]
MANYEULA F, LEGODIMO M D, MOREKI J C, et al. Soybean replacement value of canola meal as measured by growth performance and feed efficiency in broiler chickens:insights from a Meta-analysis:CANOLA MEAL HAS POOR REPLACEMENT POTENTIAL FOR SOYBEAN IN BROILER DIETS[J]. Poultry Science, 2025, 104(3):104876.

DOI

[13]
KHETO A, CHOUDHURY D B, SARKHEL S, et al. Anti-nutritional factors:nutrient interactions,processing interventions,and health aspects[J]. Food Chemistry, 2025, 496(Pt 2):146746.

DOI

[14]
FETZER A, MÜLLER K, SCHMID M, et al. Rapeseed proteins for technical applications:processing,isolation,modification and functional properties-a review[J]. Industrial Crops and Products, 2020, 158:112986.

DOI

[15]
唐辉, 谢正军, 李瑞, 等. 菜籽饼粕的营养价值、抗营养因子及其在猪饲粮中的应用[J]. 动物营养学报, 2024, 36(7):4103-4115.

DOI

TANG H, XIE Z J, LI R, et al. Nutritional value and anti-nutritional factors of rapeseed cake meal and its application in swine feeding[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4103-4115. (in Chinese)

DOI

[16]
CHO M, SMIT M N, HE L, et al. Effect of feeding zero- or high-tannin faba bean cultivars and dehulling on growth performance,carcass traits and yield of saleable cuts of broiler chickens[J]. Journal of Applied Poultry Research, 2019, 28(4):1305-1323.

DOI

[17]
SARKAR S, KUMAWAT P K, BHATT R S, et al. Isolation and characterization of tanninolytic bacteria from sheep rumen contents:assessment of tannin degrading,fibrolytic and feed digestibility potential[J]. Small Ruminant Research, 2024, 235:107272.

DOI

[18]
谭昌宏, 徐金柱, 沈国富, 等. 发酵菜籽粕在生长育肥猪饲料中的应用研究[J]. 中国饲料, 2025(5):199-204.

TAN C H, XU J Z, SHEN G F, et al. Study on the application of fermented rapeseed meal in growing-finishing pig feed[J]. China Feed, 2025(5):199-204. (in Chinese)

[19]
魏瑞芝, 刘广志, 王乐涛, 等. 菜籽粕中的抗营养因子及应用研究进展[J]. 中国饲料, 2023(7):17-20,26.

WEI R Z, LIU G Z, WANG L T, et al. Anti-nutritional factors in rapeseed meal and research progress on their application[J]. China Feed, 2023(7):17-20,26. (in Chinese)

[20]
TRIPATHI M K, MISHRA A S. Glucosinolates in animal nutrition:a review[J]. Animal Feed Science and Technology, 2007, 132(1/2):1-27.

DOI

[21]
LIU G N, ZHOU J, WANG Y, et al. A simple waste-to-wealth strategy:sustainable bioconversion of rapeseed meal-derived glucosinolates into antimicrobial isothiocyanates[J]. Food Chemistry, 2025, 495(Pt 2):146469.

DOI

[22]
贾冰玉, 邹峰余, 宋长春, 等. 微生物固态发酵条件的优化及其对菜籽粕品质改善的研究[J]. 动物营养学报, 2024, 36(1):650-657.

DOI

JIA B Y, ZOU F Y, SONG C C, et al. Optimization of solid-state fermentation condition of microorganisms and their roles in improvement of quality in rapeseed meal[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):650-657. (in Chinese)

DOI

[23]
郝怡宁, 王志高, 何荣, 等. 混菌静态发酵改善双低菜籽粕品质[J]. 中国农业科学, 2020, 53(10):2066-2077.

DOI

HAO Y N, WANG Z G, HE R, et al. Quality improvement of rapeseed meal based on static-state fermented with mixed microorganisms[J]. Scientia Agricultura Sinica, 2020, 53(10):2066-2077. (in Chinese)

DOI

[24]
VIG A P, WALIA A. Beneficial effects of Rhizopus oligosporus fermentation on reduction of glucosinolates,fibre and phytic acid in rapeseed (Brassica napus) meal[J]. Bioresource Technology, 2001, 78(3):309-312.

DOI

[25]
DASTAR B, ASHAYERIZADEH A, SHARFI F, et al. Replacement of soybean meal with fermented rapeseed meal in broiler diets:impacts on growth performance,gut health,and nutrient digestibility[J]. Poultry Science, 2025, 104(11):105616.

DOI

[26]
CZECH A, WLAZŁO Ł, ŁUKASZEWICZ M, et al. Fermented rapeseed meal enhances the digestibility of protein and macro- and microminerals and improves the performance of weaner pigs[J]. Animal Feed Science and Technology, 2023, 300:115656.

DOI

[27]
陈伊灵. 微生物混菌发酵改善菜籽粕营养特性及其在鲫鱼饲料中的应用研究[D].硕士学位论文. 淮安: 淮阴工学院, 2024.

CHEN Y L. Study on improving nutritional properties of rapeseed meal through mixed microbial fermentation and its application in crucian carp feed[D].Master’s Thesis. Huaian: Huaiyin Institute of Technology, 2024. (in Chinese)

[28]
朱江, 管文波, 唐黎姿, 等. 发酵菜籽粕的营养价值测定及其对育肥猪生长性能的影响[J]. 动物营养学报, 2024, 36(6):3587-3600.

DOI

ZHU J, GUAN W B, TANG L Z, et al. Determination of nutritional value of fermented rapeseed meal and its effects on growth performance of fattening pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3587-3600. (in Chinese)

DOI

[29]
苏泽鑫. 菌酶协同固态发酵膨化菜籽粕的创制及产品在生长猪上的营养价值评定[D].硕士学位论文. 雅安: 四川农业大学, 2024.

SU Z X. Preparation of extruded rapeseed meal by solid state fermentation with bacterials-enzymes and evaluation of nutritional value for growing pigs[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2024. (in Chinese)

[30]
ZHANG Z, XING J, LI X Z, et al. Review of research progress on the production of cellulase from filamentous fungi[J]. International Journal of Biological Macromolecules, 2024, 277(Pt 4):134539.

DOI

[31]
宋英特, 蔡瑞涛, 刘骁勇, 等. 乳酸菌与酵母菌协同发酵废弃树叶制备青贮饲料的探讨与展望[J]. 现代畜牧兽医, 2025(12):87-92.

SONG Y T, CAI R T, LIU X Y, et al. Advancements and future directions in the co-symbiotic fermentation of waste leaves for silage production with lactic acid bacteria and yeast[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2025(12):87-92. (in Chinese)

[32]
朱旗军, 刘魏魏, 章海欧, 等. 黑曲霉固态发酵柠檬酸渣的参数优化[J]. 饲料研究, 2025, 48(16):99-103.

ZHU Q J, LIU W W, ZHANG H O, et al. Optimization of solid-state fermentation parameters of citric acid residue by Aspergillus niger[J]. Feed Research, 2025, 48(16):99-103. (in Chinese)

[33]
ELKHATEEB Y A M, FADEL M. Bioinformatic studies, experimental validation of phytase production and optimization of fermentation conditions for enhancing phytase enzyme production by different microorganisms under solid-state fermentation[J]. The Open Microbiology Journal, 2022, 16:e187428582202160.

[34]
SHIMALI, YADAV N, RAJAWAT S, et al. Exploring tannase and phytase enzymes from lactic acid bacteria:applications,challenges and future perspectives[J]. Food Bioscience, 2025, 74:107902.

DOI

[35]
李文, 贾冰, 胡晓娜, 等. 枯草芽孢杆菌发酵复配饲料产品质量评定[J]. 饲料研究, 2024, 47(16):98-104.

LI W, JIA B, HU X N, et al. Quality evaluation of compound feed fermented by Bacillus subtilis[J]. Feed Research, 2024, 47(16):98-104. (in Chinese)

[36]
苗欣宇, 刘文健, 李达, 等. 枯草芽孢杆菌固态发酵工艺优化及其对豆粕营养成分的影响研究[J]. 饲料研究, 2023, 46(20):79-83.

MIAO X Y, LIU W J, LI D, et al. Study on optimization of solid-state fermentation process of Bacillus subtilis and its effect on nutritional components of soybean meal[J]. Feed Research, 2023, 46(20):79-83. (in Chinese)

[37]
DUMANDAN N G, ACDA R D P, TUMAMBING C R, et al. Insights into metabolic transformations during solid-state fermentation of copra meal by Aspergillus niger FSPL104 as affected by different nitrogen sources supplementation[J]. Bioresource Technology Reports, 2025, 30:102142.

DOI

[38]
ZHAO Y M, WANG H X, CHEN D W, et al. Co-fermentation with multiple-strains and cellulase enhances the nutritional quality of hot-pressed rapeseed meal by modifying its physicochemical properties[J]. LWT, 2024, 210:116873.

DOI

[39]
龚永会, 王涛, 张林, 等. 刈割时期对饲料油菜生物量及营养品质的影响[J]. 中国饲料, 2024(19):146-153.

GONG Y H, WANG T, ZHANG L, et al. Effect of cutting period on biomass and nutrient quality of feed Brassica napus[J]. China Feed,2024(19):146-153. (in Chinese)

[40]
寇慧, 黄长浩, 严骋, 等. 1株木质素降解菌的筛选、鉴定及固态发酵产酶优化[J]. 饲料研究, 2023, 46(9):85-92.

KOU H, HUANG C H, YAN C, et al. Screening and identification of a lignin-degrading strain and optimization of its enzyme production by solid-state fermentation[J]. Feed Research, 2023, 46(9):85-92. (in Chinese)

[41]
余佩遥, 马永霞, 李玉娟, 等. 不同酶处理对发酵油菜秸秆营养价值、发酵品质及体外瘤胃发酵特性的影响[J]. 中国饲料, 2025(9):113-122.

YU P Y, MA Y X, LI Y J, et al. Effects of different enzyme on nutritional value,fermentation quality and in vitro rumen fermentation characteristics of fermented rapeseed straw[J]. China Feed, 2025(9):113-122. (in Chinese)

[42]
ZHANG Y Q, LI H W, XIN Q, et al. The role of glycosylation in non-productive adsorption of cellulase to lignin isolated from pretreated corn stover[J]. International Journal of Biological Macromolecules, 2024, 266(Pt 1):130836.

DOI

[43]
YANG H T, LIU Y, WU X R, et al. Synergistic enhancement of enzymatic hydrolysis by DES-CTAB pretreatment via mitigating lignin-induced non-productive cellulase adsorption[J]. Bioresource Technology, 2026, 440:133510.

DOI

[44]
张新娟, 王子奥, 王佳宁, 等. 纤维素酶的酶学特性及在肉牛生产中的应用研究进展[J]. 饲料研究, 2025, 48(22):178-181.

ZHANG X J, WANG Z A, WANG J N, et al. Research progress on enzymatic characteristics of cellulase and its application in beef cattle production[J]. Feed Research, 2025, 48(22):178-181. (in Chinese)

[45]
王佳婧, 韦利赤, 许剑, 等. 豆粕植酸降解菌的筛选及发酵优化[J]. 中国饲料, 2023(11):42-49.

WANG J J, WEI L C, XU J, et al. Screening and fermentation optimization of phytic acid degrading bacteria in soybean meal[J]. China Feed, 2023(11):42-49. (in Chinese)

[46]
有小娟, 刘家扬, 焦国宝. 黑曲霉菌渣综合利用研究进展[J]. 微生物学杂志, 2017, 37(5):113-119.

YOU X J, LIU J Y, JIAO G B. Advance in comprehensive utilization of Aspergillus niger dregs[J]. Journal of Microbiology, 2017, 37(5):113-119. (in Chinese)

[47]
LIU F L, WANG B, YE Y R, et al. High level expression and characterization of tannase tan7 using Aspergillus niger SH-2 with low-background endogenous secretory proteins as the host[J]. Protein Expression and Purification, 2018, 144:71-75.

DOI

[48]
ALIYAH A, ALAMSYAH G, RAMADHANI R, et al. Production of α-amylase and β-glucosidase from Aspergillus niger by solid state fermentation method on biomass waste substrates from rice husk,bagasse and corn cob[J]. Energy Procedia, 2017, 136:418-423.

DOI

[49]
DENG H M, JIAN X Y, LI L H, et al. Solid-state fermentation of rapeseed meal using Schizochytrium ATCC 20888 to improve docosahexaenoic acid and degradate toxin[J]. Food Bioscience, 2025, 64:105946.

DOI

[50]
ZHANG Z Y, WEN M, CHANG Y Q. Degradation of glucosinolates in rapeseed meal by Lactobacillus delbrueckii and Bacillus subtilis[J]. Grain & Oil Science and Technology, 2020, 3(2):70-76.

Outlines

/