REVIEW

Nutritional Properties and Functions of D-Amino Acids and Their Application Prospects in Livestock Production

  • LIU Yaxing ,
  • CHEN Yuguang ,
  • HE Xi ,
  • XIE Kun , *
Expand
  • Yuelushan Laboratory, Provincial-Ministerial Collaborative Innovation Center for Production of High-Quality Livestock and Poultry Products, Hunan Engineering Research Center of Poultry Production Safety, Engineering Research Center for Feed Safety and Efficient Utilization of Education, College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
* associate professor, E-mail:

Received date: 2025-12-15

  Online published: 2026-07-14

Abstract

D-amino acids are natural stereoisomers of L-amino acids, sharing identical molecular formulas and backbone structures but differing in optical rotation and biological activity due to their chiral difference at the α-carbon. In the genome of organisms, L-amino acids, encoded by codons, are utilized for protein synthesis, the genetic mechanism that caused a long-held belief that proteins are composed solely of 20 canonical L-amino acids. However, advancements in chiral difference identification techniques have been discovering diverse D-amino acids and isolating them in living organisms. For instance, D-serine (D-Ser), acts as a critical neurotransmitter regulating the N-methy-D-aspartate receptor, influencing neural transmission, learning and memory, its dysregulation may implicate in neurodegenerative diseases. D-alanine (D-Ala) and D-glutamate (D-Glu) modulate bacterial survival by altering cell wall structures and affect animal immune responses. Additionally, gut microbiota-derived D-amino acids profoundly impact host metabolism and health, particularly in energy balance and metabolic regulation. These findings highlight the growing hot research of D-amino acid diversity and their biological significance. This review systematically organizes current knowledge on the functions and mechanisms of D-amino acids and explores their potential applications and strategic utilization in livestock production, providing a theoretical foundation for their development in the feed industry.

Cite this article

LIU Yaxing , CHEN Yuguang , HE Xi , XIE Kun . Nutritional Properties and Functions of D-Amino Acids and Their Application Prospects in Livestock Production[J]. Chinese Journal of Animal Nutrition, 2026 , 38(7) : 4841 -4853 . DOI: 10.12418/CJAN2026.388

D-氨基酸作为L-氨基酸的天然立体异构体,长期以来在动物营养研究中关注不足。与参与蛋白质合成的L-氨基酸不同,D-氨基酸虽不直接参与蛋白质合成,但在细胞信号传导、免疫调节及微生物稳态等生命过程中发挥重要作用[1-3]。研究表明,D-色氨酸(D-Trp)可通过芳香烃受体(aryl hydrocarbon receptor,AhR)信号通路促进调节性T细胞分化,从而减轻肠道炎症并抑制病原菌感染[4-5]。此外,D-丙氨酸(D-Ala)、D-天冬氨酸(D-Asp)等D-氨基酸在神经内分泌调节、肠道屏障维持及细菌细胞壁代谢中同样具有重要功能,为开发新型功能性饲料添加剂提供了分子基础[6-8]。尽管D-氨基酸在基础生物学研究中已取得一定进展,但其在畜禽营养中的应用仍处于起步阶段,其代谢途径、营养调控机制及适宜添加形式与剂量关系尚不明确,限制了D-氨基酸在饲料工业中的系统开发与应用。因此,本文综述了D-氨基酸的生理功能和营养效应,重点阐述了其在动物肠道健康、免疫调节和生长性能中的作用机制和研究进展,以期为D-氨基酸在畜牧生产中的科学应用提供参考,并推动氨基酸营养研究向微生物-宿主互作机制的方向发展。

1 D-氨基酸的自然分布

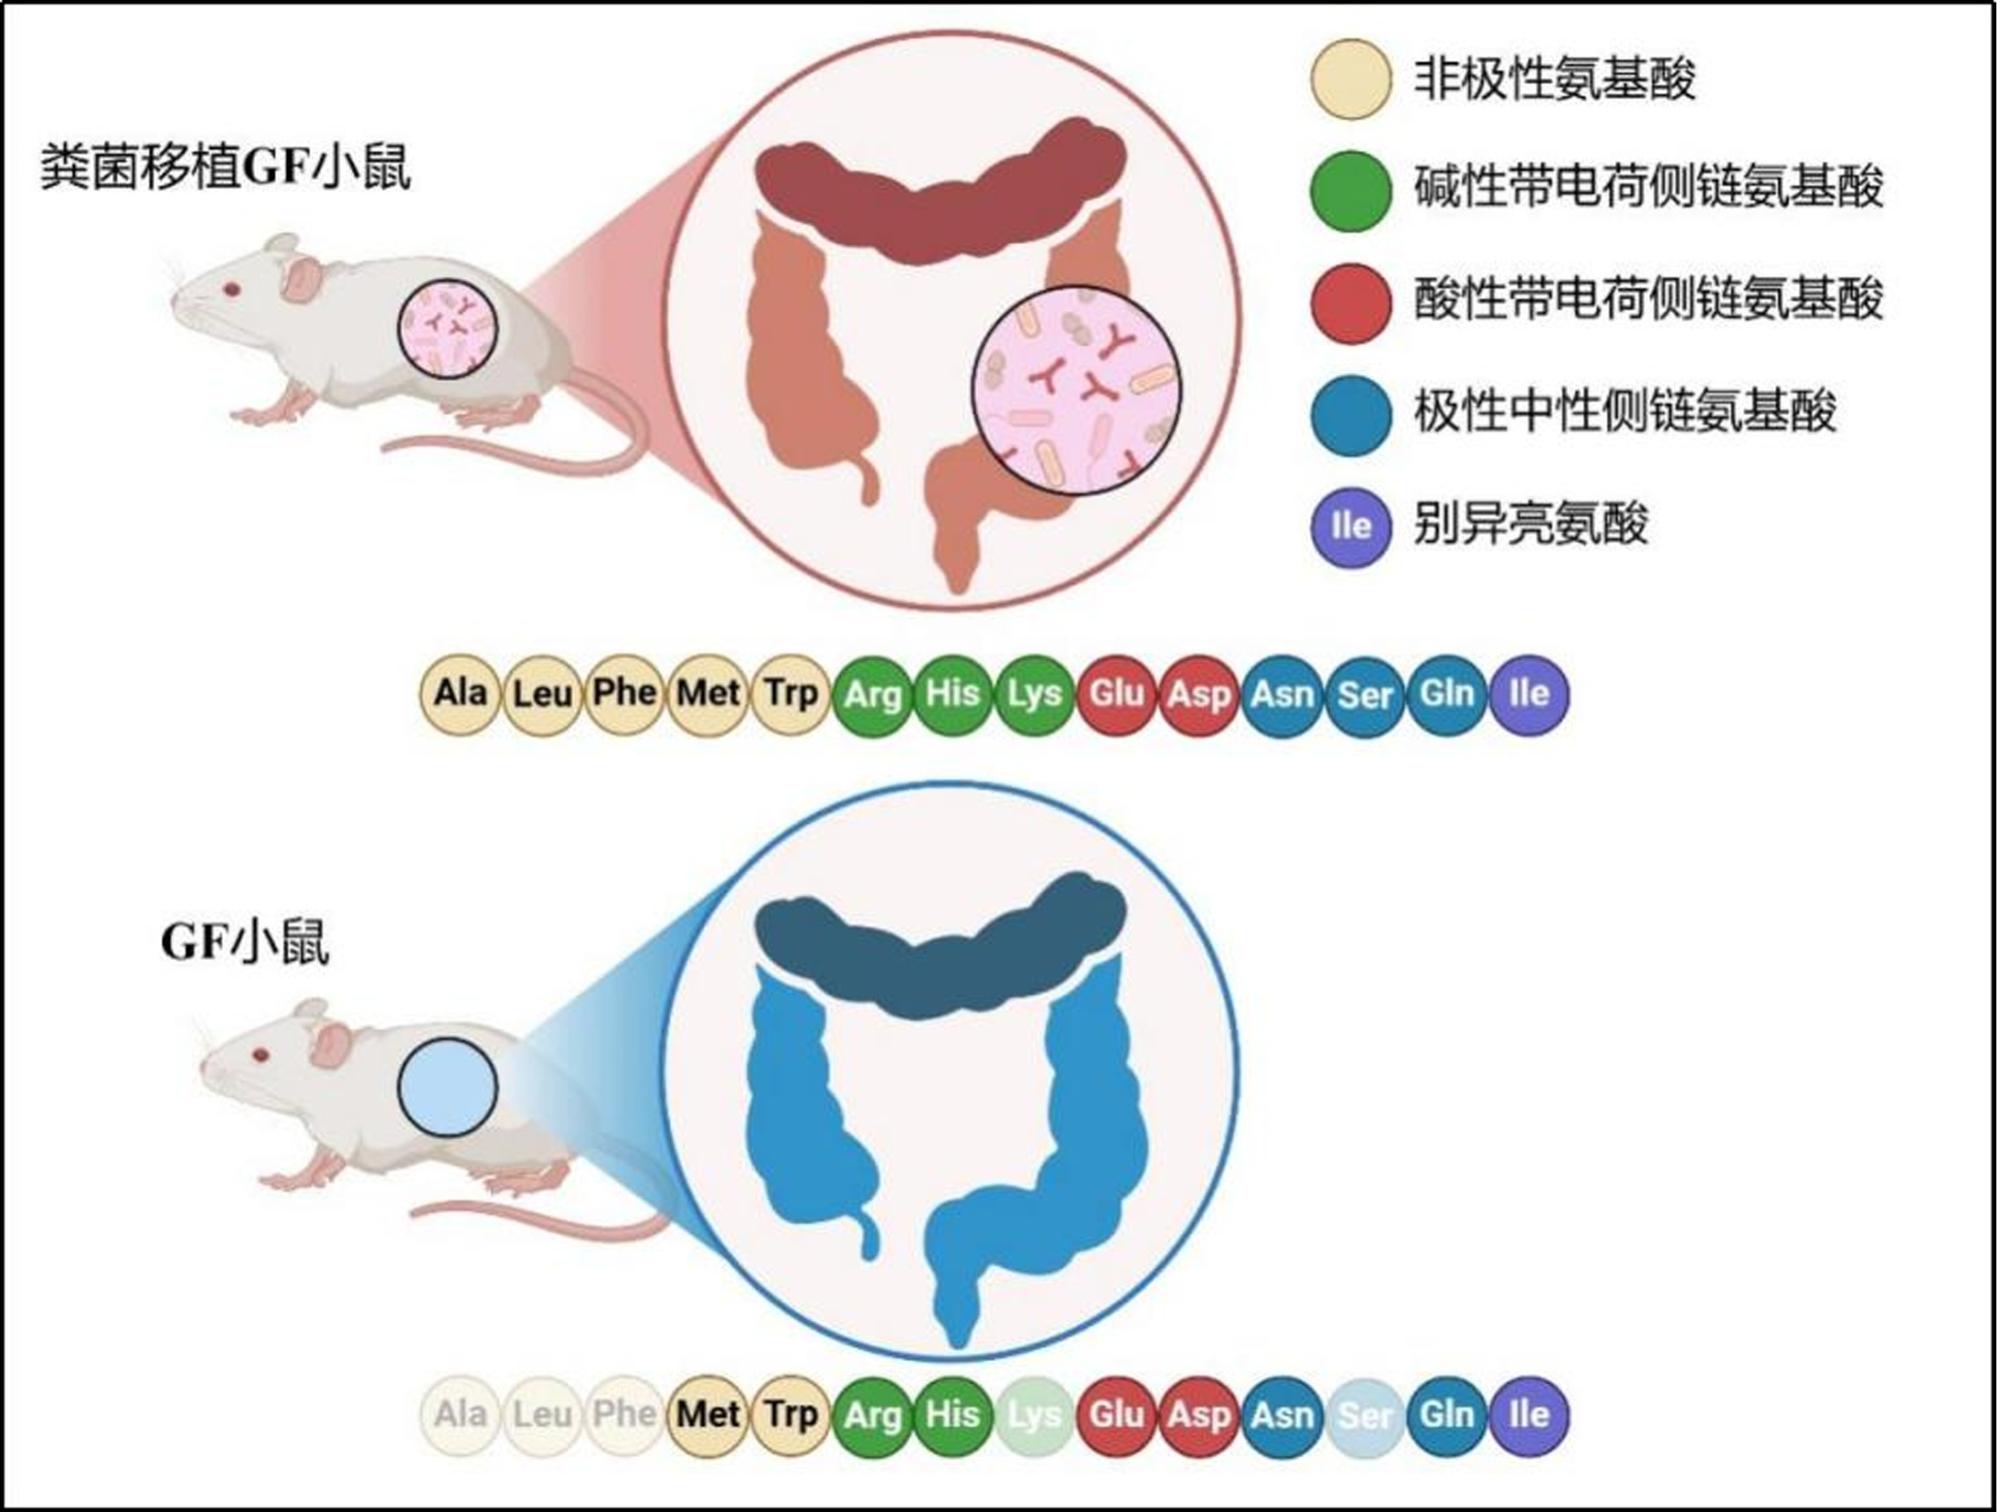
D-氨基酸最早在海洋微生物中被发现,是海洋有机碳库的重要组成部分,主要来源于细菌肽聚糖(peptidoglycan,PG)的分解[9]。在哺乳动物体内,D-氨基酸主要来源于饮食摄入、肠道微生物的生物合成及发酵产物和细菌细胞壁成分的降解[5]。肠道微生物产生的D-氨基酸对宿主代谢和健康具有重要影响,尤其参与能量平衡和代谢调控[7,10]。研究表明,肠道是机体D-氨基酸的重要来源和储存库,与粪菌移植无菌小鼠相比,无菌小鼠结肠腔内游离D-氨基酸组成存在显著差异(图1),在粪菌移植无菌小鼠肠道中检测到14种D-氨基酸,包括D-Ala、D-Asp、D-精氨酸(D-Arg)、D-天冬酰胺(D-Asn)、D-谷氨酰胺(D-Gln)、D-谷氨酸(D-Glu)、D-组氨酸(D-His)、D-别异亮氨酸(D-allo-Ile)、D-亮氨酸(D-Leu)、D-赖氨酸(D-Lys)、D-蛋氨酸(D-Met)、D-苯丙氨酸(D-Phe)、D-丝氨酸(D-Ser)和D-Trp,而无菌小鼠肠道中未检测到D-Ala、D-Leu、D-Lys、D-Phe和D-Ser;与无菌小鼠相比,粪菌移植无菌小鼠结肠腔内大多数D-氨基酸含量显著升高,仅D-Asn在粪菌移植无菌小鼠中低于无菌小鼠,提示至少5种D-氨基酸可直接来源于肠道微生物代谢;同时,在无菌小鼠和粪菌移植无菌小鼠肠道中均未检测到D-半胱氨酸(D-Cys)、D-异亮氨酸(D-Ile)、D-苏氨酸(D-Thr)、D-别苏氨酸(D-allo-Thr)、D-酪氨酸(D-Tyr)和D-缬氨酸(D-Val)[11]
图1 无菌小鼠和粪菌移植无菌小鼠肠道D-氨基酸的组成差异

GF:无菌 germ-free;Ala:丙氨酸 alanine;Leu:亮氨酸 leucine;Phe:苯丙氨酸 phenylalanine;Met:蛋氨酸methionine;Trp:色氨酸 tryptophan;Arg:精氨酸 arginine;His:组氨酸 histidine;Lys:赖氨酸 lysine;Glu:谷氨酸 glutamic acid;Asp:天冬氨酸 aspartic acid;Asn:天冬酰胺 asparagine;Ser:丝氨酸 serine;Gln:谷氨酰胺 glutamine;Ile:异亮氨酸 isoleucine。

Fig.1 Differences in gut D-amino acid composition between germ-free mice and fecal microbiota transplanted germ-free mice

在细菌中,D-氨基酸具有多种重要的生物学功能。D-氨基酸是细菌细胞壁PG的重要组成成分,其缺乏将导致PG结构受损,从而引发细胞渗透性裂解[8]。此外,D-氨基酸还与抗菌剂作用密切相关。例如,β-内酰胺类抗生素(如青霉素)通过靶向PG中的D-Ala抑制细胞壁合成;在抗生素压力下,部分细菌可通过以D-Ser或D-Asp替代D-Ala,从而降低万古霉素等抗菌剂的结合能力,体现出细菌对抗菌压力的适应性进化机制[12-13]。外源性及微生物来源的D-氨基酸可通过肠道上皮吸收进入体循环,D-氨基酸构成的寡肽可被肠道有效吸收并进入体循环。以放射性碘标记的D-八肽灌胃大鼠试验显示,约50%的D-八肽能以完整形式从尿液中检出,直接证实完整D-氨基酸寡肽可经肠道吸收、进入体循环并经肾脏排泄[14]。该吸收过程主要依赖细胞旁路途径,尤其与溶剂拖曳效应密切相关。当肠道内存在高浓度葡萄糖时,肠上皮细胞间紧密连接扩张,水分快速吸收产生的溶剂拖曳力可携带D-八肽、肌酐等脂不溶性小分子通过细胞间隙被吸收。研究显示,这种由溶剂拖曳介导的细胞旁路吸收效率极高,其吸收速率可达到甚至超过葡萄糖载体介导的主动转运最大值,是一条重要且高效的寡肽吸收途径[14]。多种肠道微生物具有合成D-Ala的能力,并表现出明显的菌株差异[15]。在结肠上皮细胞中,溶质载体家族6成员14(solute carrier family 6 member 14,SLC6A14)等高亲和力氨基酸转运体可主动转运D-Ser和D-Ala进入血液循环[16],且在肠道组织及肠腔内容物中均可检测到D-Ala[17]
肝脏是机体D-氨基酸代谢与清除的核心器官,其富含高活性的D-氨基酸氧化酶(D-amino acid oxidase,DAAO),是鱼类及哺乳动物降解D-Ala和D-Ser的重要部位[18-19]。同位素示踪研究表明,肝脏可快速摄取血液中的D-Asp类似物及L-Glu,从而维持体内氨基酸稳态并避免潜在的神经毒性[18]。在中枢神经系统中,D-氨基酸则主要发挥信号分子功能。脑组织是D-氨基酸发挥神经调质作用的重要部位,其中D-Ser由丝氨酸消旋酶(serine racemase,SR)内源性合成,作为N-甲基-D-天冬氨酸(N-methyl-D-aspartic acid,NMDA)受体的重要共激动剂[19-20]。NMDA受体是学习和记忆等高级神经活动的关键分子基础[21]。此外,D-Ala亦可在脑组织中富集并发挥类似的神经调节作用[17]。脑组织中D-Ser含量受到DAAO的精密调控,其代谢失衡已被证实与多种神经精神疾病密切相关[19]
D-氨基酸衍生物在藻类和高等植物中也有分布,主要以二肽或丙二酸酯等形式存在[22]。尽管目前关于D-氨基酸的研究仍处于不断发展阶段,其生物学功能及应用潜力尚未完全阐明,但越来越多的研究表明,D-氨基酸在调控微生物群落结构、抑制生物膜形成以及替代传统抗生素等方面具有重要应用前景,值得在动物健康与食品安全领域进一步深入研究与验证。

2 动物体内D-氨基酸的代谢途径

2.1 DAAO和D-天冬氨酸氧化酶(D-aspartate oxidase,DAO)的功能及特性

D-氨基酸在动物体内的代谢主要依赖特定氧化酶的催化,其中DAAO和DAO是真核生物和细菌中最重要的2类关键酶,两者分别催化中性D-氨基酸和酸性D-氨基酸的氧化反应,在维持体内D-氨基酸稳态中发挥核心作用。DAAO属于黄素腺嘌呤二核苷酸(flavin adenine dinucleotide,FAD)依赖型氧化还原酶,具有严格的立体选择性,对L-氨基酸几乎无催化活性,但对多种中性D-氨基酸(如D-Ala、D-Ser等)具有较高催化效率。DAAO主要催化D-氨基酸的氧化脱氨反应,生成相应的α-酮酸、氨和过氧化氢(H2O2)[23-24]。相比之下,DAO主要催化酸性D-氨基酸的氧化反应,对中性D-氨基酸几乎没有活性,在DAO催化过程中,D-Asp和D-Glu被氧化生成相应的α-酮酸,同时产生H2 ${{\mathrm{O}}_{2}}^{\left[25\right]}$。DAAO和DAO在组织分布和底物特异性上具有明显差异,共同构成动物体内D-氨基酸代谢的关键酶学体系。

2.2 肠道微生物与D-氨基酸的代谢作用

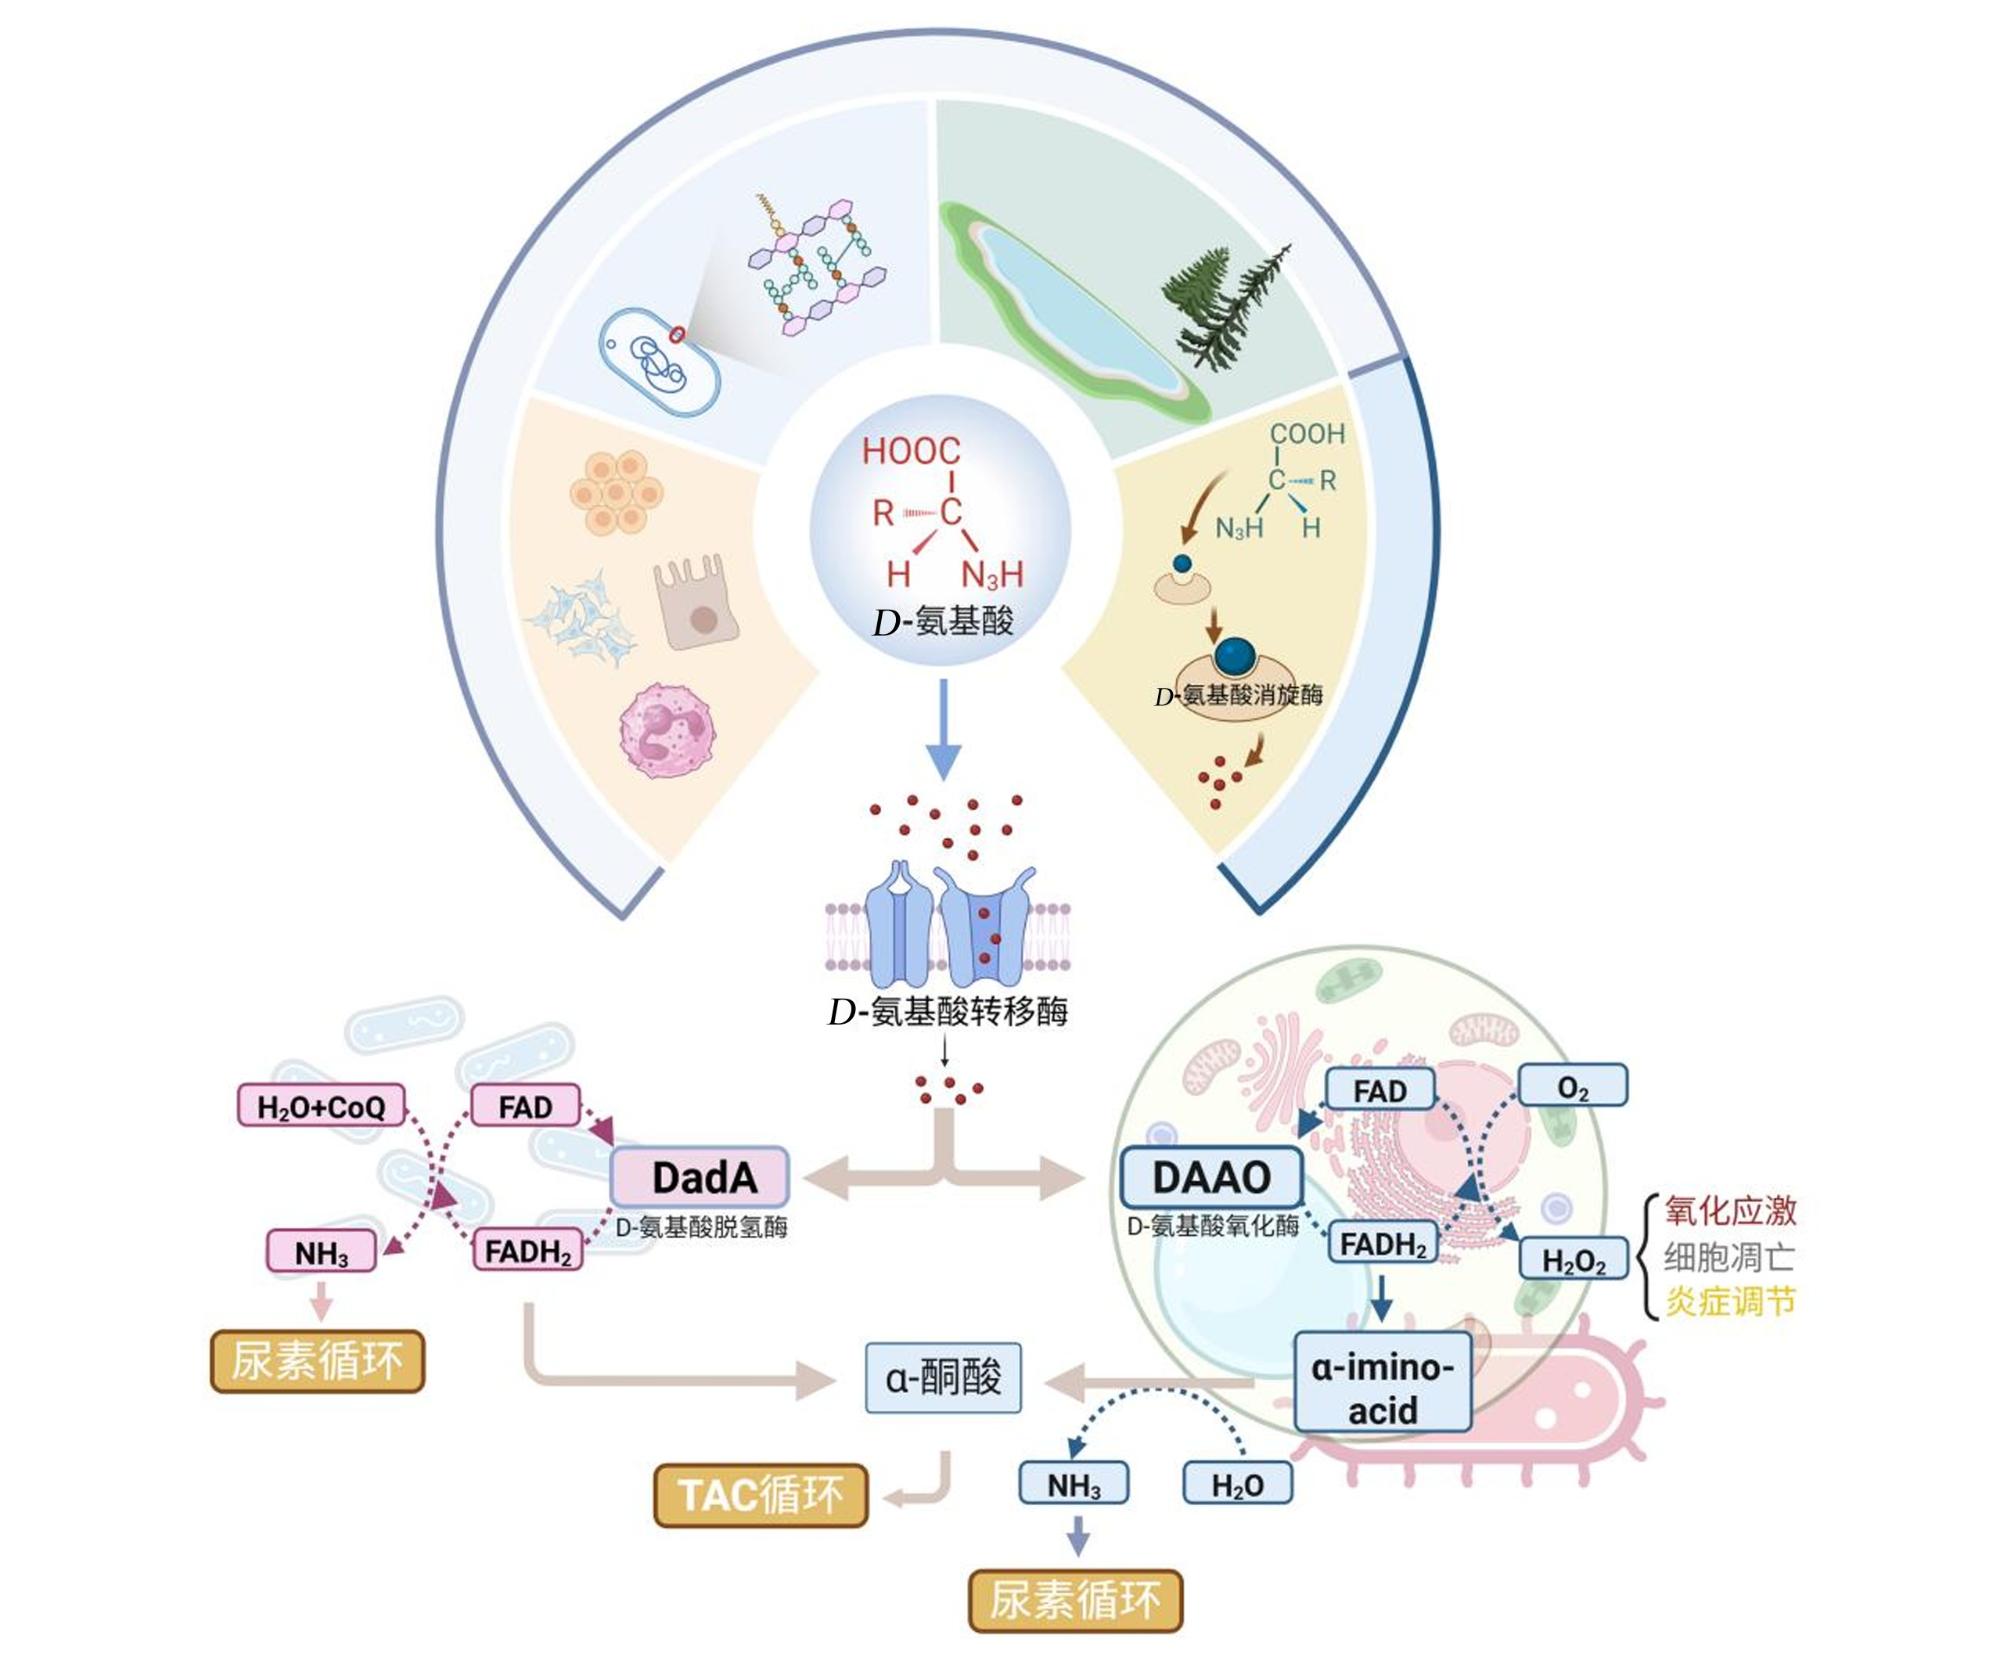
氨基酸消旋酶可通过改变氨基酸α-碳的手性构型,将L-氨基酸转化为D-氨基酸,是机体内D-氨基酸形成的重要途径之一[26-27]。肠道微生物被认为是宿主D-氨基酸的重要来源,许多细菌均表达氨基酸消旋酶。研究表明,与无菌小鼠相比,常规小鼠肠道中D-氨基酸含量显著升高[11]。如图2所示,肠道微生物产生的D-氨基酸释放至肠腔后,可被宿主DAAO氧化生成亚胺中间体和H2O2,从而参与调节肠道微生物群组成,是维持肠道稳态的重要先天免疫机制之一;随后,该中间体经进一步水解或脱氨反应转化为α-酮酸,α-酮酸可被宿主或微生物用于L-氨基酸再合成,或进入三羧酸循环参与能量代谢[28]。例如,共生乳杆菌可将L-氨基酸转化为D-氨基酸,并被宿主DAAO氧化产生H2 ${{\mathrm{O}}_{2}}^{[29-30]}$。由于部分共生菌对H2O2的耐受性高于致病菌,因此能够在宿主免疫反应中获得竞争优势,从而抑制致病菌生长。此外,肠道细菌产生的D-氨基酸还可通过模式识别受体激活宿主先天免疫反应,从而维持肠道菌群稳态。例如,在DAAO突变小鼠中,分泌型免疫球蛋白A含量及小肠免疫球蛋白A阳性细胞数量显著增加,提示D-氨基酸代谢在肠道黏膜免疫调控中具有重要作用[7]
图2 D-氨基酸的来源与代谢

DadA:D-氨基酸脱氢酶 D-amino acid dehydrogenase;DAAO:D-氨基酸氧化酶 D-amino acid oxidase;α-imino-acid:α 亚氨基酸;H2O:水 water;H2O2:过氧化氢 hydrogen peroxide;NH3:氨气 ammonia; FAD:黄素腺嘌呤二核苷酸 flavin adenine dinucleotide;FADH2:还原型黄素腺嘌呤二核苷酸 reduced flavin adenine dinucleotide;CoQ:辅酶Q coenzyme Q。

Fig.2 Sources and metabolism of D-amino acids

在病原菌感染过程中,部分细菌可通过调节D-氨基酸代谢以逃避免疫清除。例如,沙门氏菌依赖ATP结合盒转运蛋白中D-Ala结合蛋白将D-Ala从周质空间转运至胞内,从而降低胞外D-Ala含量并减少DAAO产生的H2O2含量,减轻氧化损伤,促进细菌在宿主细胞内存活[31]。在高等动物体内,D-氨基酸主要来源于内源性合成及共生微生物代谢[7]。当摄入量超过机体代谢能力时,可能扰乱氨基酸代谢平衡。例如,在提高生物催化效率的研究中,重组表达DAAO的酵母菌株出现明显毒性,需要通过优化培养条件维持其生长[32]。这一现象提示,D-氨基酸代谢可能对细胞产生一定的代谢压力,因此在评估其作为饲料添加剂的应用时需要谨慎。

3 D-氨基酸的生理功能及其作用

越来越多的证据表明,D-氨基酸在动物体内不仅作为代谢中间体存在,还在神经调节、内分泌调控、免疫反应及微生物稳态维持等多种生理过程中发挥重要作用。不同类型的D-氨基酸在功能上具有一定特异性。因此,系统总结不同D-氨基酸的生理功能,对于阐明其在动物健康与营养调控中的作用具有重要意义。

3.1 D-Asp的生理功能及作用

3.1.1 D-Asp的体内分布与代谢途径

D-Asp是天冬氨酸的D型立体异构体,在动物体内主要由天冬氨酸消旋酶催化L-天冬氨酸(L-Asp)转化生成,并可通过DAO降解为α-酮酸等代谢产物。D-Asp广泛分布于脑、视网膜、松果体、垂体、肾上腺和睾丸等组织,并在神经和内分泌系统中具有较高含量,其含量随组织发育逐渐升高,并在成熟阶段达到峰值[33]

3.1.2 D-Asp的生理功能

D-Asp在神经系统中具有多种功能。作为NMDA受体激动剂,其作用于谷氨酸离子型受体NMDA亚单位2调控神经传递。D-Asp可通过激活NMDA受体介导的钙离子(Ca2+)信号通路,调节神经元活动和突触可塑性[34]。研究表明,D-Asp可通过下丘脑-垂体-性腺轴(HPG轴)多途径调控睾酮的合成与释放[27]。而睾酮水平升高与精子发生密切相关,在小鼠中D-Asp含量在生殖期达到峰值[35]。此外,D-Asp还可在D-天冬氨酸甲基转移酶作用下转化为NMDA,进一步参与激素释放调控。D-Asp还可通过腺苷酸环化酶-环磷酸腺苷(cAMP)信号通路促进大鼠睾丸中睾酮生成,并上调类固醇生成急性调节蛋白(steroidogenic acute regulatory protein,StAR)的表达,StAR负责胆固醇向线粒体内膜的转运,是类固醇激素合成的关键调控因子[36-37]。在神经内分泌系统中,D-Asp可响应钾离子(K+)刺激或电信号促进激素的合成与释放,并通过促进下丘脑促性腺激素释放激素的合成,间接调节多种激素水平,从而在生殖应激条件下维持正常的生殖功能[38]。因此,D-Asp被认为是调控神经内分泌及生殖功能的重要信号分子,对提高动物繁殖性能具有潜在意义。

3.1.3 D-Asp在畜禽生产中的应用

近年来,D-Asp在动物生产中的潜在应用逐渐受到关注。研究表明,外源补充D-Asp能够影响性激素分泌,从而参与动物生殖功能调控。在多种动物模型中,补充D-Asp可促进睾酮合成并刺激精子发生,对改善繁殖性能具有一定促进作用。作为饲料添加剂,口服3.75 mmol/kg BW的D-Asp已被证明能够在高温环境下降低动物体温并提高其耐热能力[39]。此外,D-Asp还可通过调节体温、增强免疫功能、改善生产性能及调控神经信号传导等多种机制,帮助动物适应环境应激。
综上所述,D-Asp在调控生殖功能和缓解环境应激方面具有一定的应用潜力。然而,目前关于其在畜禽生产中的研究仍相对有限,其适宜添加剂量、作用机制及长期应用效果仍有待进一步系统研究。

3.2 D-Ser的生理功能及作用

3.2.1 D-Ser的体内分布与代谢途径

1992年Hashimoto等[40]首次在大鼠额叶脑区发现D-Ser,其含量占大脑丝氨酸总量的20%~25%,并在整个生命周期中广泛存在于额叶区域,新生小鼠小脑中D-Ser含量较高,随年龄增长逐渐下降。免疫组织化学研究表明,D-Ser主要定位于原生质型星形胶质细胞,这些细胞包绕神经末梢并参与突触调节[41]D-Ser主要由SR将L-丝氨酸(L-Ser)转化生成,并通过DAAO降解,从而维持体内D-Ser含量的动态平衡。其含量变化对神经系统功能具有重要影响。

3.2.2 D-Ser的生理功能

除神经传递外,D-Ser还参与内分泌与代谢调控。研究表明,SR在人类和小鼠胰岛中均有表达,提示D-Ser可能参与胰岛功能及葡萄糖代谢调节[42]。外源补充D-Ser可改善高脂饮食诱导的肥胖和葡萄糖不耐受,而SR敲除小鼠表现出更高的葡萄糖耐受量并伴随NMDA受体表达下降[43]。这些结果表明,D-Ser可能通过NMDA受体信号通路调节胰岛功能并影响葡萄糖代谢。尽管如此,D-Ser在神经传递和代谢调控中的具体作用机制仍有待进一步阐明,尤其是在不同生物体系中的调控模式。

3.2.3 D-Ser在畜禽生产中的应用

研究显示,通过饮水补充1% D-Ser持续饮用6~8周可能损伤小鼠胰岛素分泌功能,并诱发高血糖症[42]。益生菌的研究进一步支持了D-Ser在代谢调控中的作用。例如,益生菌乳酸片球菌(Pediococcus acidilactici)PA-1能够缓解饮食诱导的肥胖,其机制之一是通过调节肝脏氨基酸代谢,显著降低肝脏中D-Ser含量[44]。此外,在试验性结肠炎小鼠模型中,口服1.5% D-Ser水溶液持续饮用7 d,D-Ser表现出显著的保护和治疗作用,能够抑制CD4+T细胞活化与增殖,并限制其向促炎性辅助性T细胞(Th)1和Th17分化[45]。这些结果表明,在饲粮中添加D-Ser可能有助于改善动物肥胖和代谢紊乱,减轻肠道炎症,从而提高饲料利用率和动物福利。
以上研究表明,D-Ser在调节能量代谢和肠道免疫方面具有潜在作用。尽管目前相关研究主要集中于啮齿类动物模型,但其在调控代谢稳态和肠道炎症方面的功能提示,D-Ser可能在改善动物健康和提高生产性能方面具有一定应用前景。未来仍需通过更多畜禽试验进一步验证其安全性及适宜添加水平。

3.3 D-Ala的生理功能及作用

3.3.1 D-Ala的体内分布和代谢途径

在哺乳动物体内,D-Ala的来源主要包括肠道微生物和饮食摄入[17]。口服D-Ala可迅速被吸收进入血液循环,药代动力学研究显示,单次口服D-Ala可在约0.6 h达到血药浓度峰值,并通过肾脏快速清除,半衰期约0.46 h[46]。吸收后的D-Ala呈时间依赖性分布,并可在胰腺、脑和垂体等组织中积累[17]。在微生物中,D-Ala主要由丙氨酸消旋酶催化L-丙氨酸(L-Ala)转化生成,并进一步通过连接酶形成二肽D-Ala-D-Ala。该代谢途径是多种细菌细胞壁合成所必需,若被阻断可导致细菌生长受抑、细胞壁缺陷甚至裂解。在铜绿假单胞菌中,D-Ala脱氢酶可将D-Ala转化为丙酮酸,以维持胞内代谢稳态[47]。由于该代谢途径在细菌中高度保守而在哺乳动物中不存在,因此被认为是潜在的抗菌药物靶点。

3.3.2 D-Ala的生理功能

D-Ala是细菌细胞壁的重要结构成分,在PG合成及细胞壁稳定性中发挥关键作用。研究通过敲除金黄色葡萄球菌(Staphylococcus aureus)的丙氨酸消旋酶基因,构建了无法合成D-Ala的突变菌株,该突变株在BALB/c小鼠体内毒力显著降低;与之相比,野生型菌株可在小鼠血液中快速繁殖并引发菌血症,而D-Ala缺乏型菌株无法有效复制或扩散至内脏组织;这表明D-Ala在金黄色葡萄球菌感染和增殖过程中具有关键作用,提示以D-Ala合成途径为靶点的抗菌策略可能成为新的抗感染手段[48-50]。此外,D-Ala代谢相关酶也被广泛应用于益生菌工程菌构建,例如利用丙氨酸消旋酶作为选择标记构建无抗生素筛选体系,为开发安全的益生菌表达载体提供了新的技术途径[51]

3.3.3 D-Ala在畜禽生产中的作用

D-Ala是部分益生菌(如植物乳杆菌)细胞壁成分脂磷壁酸(lipoteichoic acid,LTA)的重要修饰基团。研究表明,含D-Ala的LTA可显著抑制病毒模拟物聚肌苷酸-聚胞苷酸(polyinosinic-polycytidylic acid,Poly I:C)或细菌鞭毛蛋白诱导的炎症反应,并降低猪外周血单核细胞及肠道上皮细胞中促炎因子白细胞介素-8(IL-8)的产生[52-53]。因此,在饲粮中添加能够合成D-Ala修饰LTA的益生菌株,可能有助于缓解病原感染引起的肠道炎症,改善肠道健康,从而部分替代抗生素的使用。
此外,D-Ala相关代谢酶也是开发生物解毒剂的重要靶点。例如,枯草芽孢杆菌ANSB168产生的D-丙氨酰-D-丙氨酸羧肽酶可将饲料中的赭曲霉毒素A(OTA)降解为低毒性的赭曲霉毒素α;蛋鸡饲养试验表明,添加该菌的冻干培养物可显著缓解OTA引起的肝脏和肾脏损伤、氧化应激、炎症反应及体液免疫异常,表明基于D-Ala代谢途径的产酶益生菌或相关酶制剂可作为霉菌毒素生物降解剂开发为饲料添加剂,以保障畜禽健康和生产安全[54]。由此可见,基于D-Ala代谢途径的产酶益生菌或相关酶制剂具有开发为饲料添加剂或霉菌毒素生物降解剂的潜在价值。

3.4 D-Trp的生理功能及作用

3.4.1 D-Trp的体内分布和代谢途径

1901年,Hopkins在水解牛奶蛋白时首次分离出并命名为色氨酸。色氨酸含有α-氨基、α-羧基及吲哚侧链,属于具有芳香族侧链的氨基酸。L-Trp不仅是蛋白质的组成成分,还参与多种生物过程,如神经递质合成、烟酰胺腺嘌呤二核苷酸生成以及AhR信号调控[55]。相比之下,D-Trp作为L-色氨酸(L-Trp)的立体异构体,主要来源于肠道微生物代谢,在免疫调节和维持宿主健康方面具有重要作用。口服D-Trp后可被肠道吸收进入循环,并在血浆、肝脏、前脑和小脑等组织中检测到由其转化生成的L-Trp[56]。放射性示踪研究进一步揭示了其体内分布特征,例如使用碳-11(11C)标记的1-甲基-D-色氨酸(11C-D-1 MTrp)进行正电子发射断层显像/X线计算机体层(PET/CT)成像时,肾脏中放射性信号最为显著[57]。此外,外周给药的D-Trp能够穿过血脑屏障进入中枢神经系统,并在脑组织中检测到其代谢产物[56]
D-Trp的代谢主要由DAAO启动,生成吲哚丙酮酸和D-犬尿氨酸等中间产物[58]。这些代谢物既可进一步形成AhR激动剂,也可进入犬尿氨酸代谢途径,产生犬尿酸、3-羟基犬尿氨酸和喹啉酸等具有神经活性和免疫调节作用的代谢物[56]。因此,D-Trp被认为是连接肠道微生物代谢、免疫调控和神经功能的重要代谢节点。

3.4.2 D-Trp的生理功能

研究表明,在造模期间通过自由饮水摄入浓度为1.8或18.0 mg/dL(每只约0.09或0.90 mg/d)D-Trp,可显著增加小鼠肺部和肠道中的调节性T细胞(Tregs)数量,抑制Th2介导的免疫反应,从而缓解试验性哮喘的过敏性气道炎症和气道高反应性;此外,过敏性气道炎症会降低肠道微生物多样性,而D-Trp能够恢复哮喘小鼠肠道菌群多样性[59]。饲粮中添加1% D-Trp还可通过调节吲哚丙烯酸水平增强肠道抗感染能力;例如,D-Trp通过增加Tregs数量和功能并减少促炎细胞因子产生,可显著改善葡聚糖硫酸钠诱导的肠炎,提高小鼠对啮齿枸橼酸杆菌(Citrobacter rodentium)感染的存活率,同时抑制肠道致病菌生长[4]。此外,体外培养体系中添加1 mmol/L D-Trp还能显著抑制假单胞菌和金黄色葡萄球菌的生物膜形成,降低细菌附着率,并干扰细菌群体感应相关基因的表达,从而破坏生物膜结构。与L-Trp或DL-色氨酸(DL-Trp)相比,D-Trp的抑制作用更为显著[60]。这些研究表明,D-Trp在调节免疫反应、维持肠道菌群稳态以及抑制细菌生物膜形成方面具有重要作用。

3.4.3 D-Trp在畜禽生产中的作用

D-Trp的营养价值研究结果存在分歧。一些研究认为D-Trp对雏鸡的营养价值接近或低于L-Trp。例如,Morrison等[61]研究发现,注射D-Trp与L-Trp对雏鸡生长的促进作用相似,口服给药D-Trp可以利用但效率极低,需超量添加,远远超过L-Trp需要量。Sugahara等[62]研究则表明,D-Trp的营养价值较低。除营养作用外,D-Trp还表现出显著的抗菌活性,尤其对食源性病原体具有较强抑制作用,因此被认为是潜在的食品添加剂[63]。进一步研究表明,D-Trp的营养价值可能依赖于肠道微生物群组成及其代谢活动。例如,当饲料以葡萄糖为主要碳源时,L-Trp的活性约为DL-Trp的2倍;而以淀粉替代葡萄糖时,D-Trp的营养价值显著下降,说明饲料组成通过影响肠道菌群而改变D-Trp的利用效率[64]D-Trp是特定益生菌如乳杆菌属和芽孢杆菌独有的代谢产物。研究表明,在无菌动物模型或使用抗生素抑制肠道菌群的条件下,D-Trp的生物利用度和营养价值显著下降,表明其代谢与活性高度依赖于肠道微生物群的存在[59]。这些研究为开发基于D-Trp的抗菌策略提供了理论依据,尤其在控制生物膜相关感染和生物污染方面具有潜在应用价值。
D-Trp在改善肠道健康和调节肠道微生物群方面具有独特优势,其抗菌和免疫调节作用为畜禽饲养提供了新的应用方向。研究表明,D-Trp可通过调节色氨酸代谢途径重塑肠道菌群结构,增加有益菌丰度并抑制病原菌生长;一方面,其通过竞争性抑制或抗菌物质分泌直接限制致病菌增殖;另一方面,其通过激活AhR信号通路抑制过度炎症反应并维持肠道稳态,降低肠炎发生风险[4]D-Trp对肠道微生物多样性和稳态的调控有助于改善畜禽健康,为开发新型饲料添加剂提供了理论基础。随着其代谢调控机制的进一步阐明,D-Trp在畜禽养殖中的应用前景将更加广阔。因此,D-Trp在调节肠道菌群结构和免疫反应方面具有潜在应用价值,有望作为新型功能性饲料添加剂用于改善畜禽肠道健康。

3.5 D-Met的生理功能及作用

3.5.1 D-Met的体内分布和代谢途径

蛋氨酸(Met)是一种含硫的非极性脂肪族氨基酸,也是蛋白质合成所必需的氨基酸。自然界中主要以L-蛋氨酸(L-Met)形式存在,D-Met在动物体内需在肝脏或肾脏中转化为L-Met后才能被利用。该转化过程包括脱氨和再胺化反应:首先由DAAO将D-Met氧化为α-酮-γ-甲硫基丁酸,随后在转氨酶催化下立体特异性再胺化生成L-Met[65]。这一过程伴随H2O2生成,可能对动物生理状态产生一定影响。

3.5.2 D-Met的生理功能

L-Met相比,其前体羟基蛋氨酸钙(HMTBa)具有更强的抗微生物特性,HMTBa未解离形式具有亲脂性,可穿过细菌细胞膜并改变胞内氢离子浓度,从而抑制细菌生长[66]。研究表明,D-Met对肠道致病菌具有显著抑制作用。例如,D-Met与D-Trp均可降低致病菌引起的动物死亡率,减轻肠道炎症并恢复肠道微生物多样性,此外,不同浓度的D-Met对抑菌效果和肠道健康的影响存在差异,在血清和粪便中均可检测到不同浓度的D-Met[4]。研究还发现,当大肠杆菌(Escherichia coli)在含D-Met的环境中生长时,这些D-Met可被共价结合至细胞壁PG中,从而调节PG的组成、数量和结构强度,帮助细菌适应环境变化[67-68]。此外,外源性D-Met还可增强抗生素作用。例如,D-Met与头孢菌素或单环β-内酰胺类抗生素联用时,可使霍乱弧菌由杆状转变为球形,表现出显著的协同作用,而单独使用D-Met仅引起轻微形态变化[69]

3.5.3 D-Met在畜禽生产中的应用

Met是玉米-豆粕型饲粮中的第一限制氨基酸,对蛋白质合成和肉鸡生长性能具有重要作用[70]。当肠道功能受损或L-Met不足时,机体需额外消耗能量将D-Met转化为L-Met以满足代谢需求[65]。由于基础饲粮中Met含量不足,生产中通常通过添加晶体D-Met或L-Met来补充,以提高饲粮氨基酸的利用效率,并获得最佳经济效益[71-72]。此外,D-Met可能通过调节细菌细胞壁PG合成或修饰相关酶的活性发挥作用。在抗菌领域,D-Met可增强抗生素疗效并改善感染控制;在动物营养中,其调节肠道微生物群的能力为开发新型饲料添加剂提供了方向;同时,其在细菌细胞壁修饰及抗药性研究中也具有重要价值[69,73]
综上所述,D-Met在动物营养调控和抗菌策略中具有广阔应用前景,不仅能够增强抗生素效果,还可能通过调节肠道微生物群改善动物健康,并为研究细菌抗药性机制提供新的工具。

4 D-氨基酸产业

近年来,D-氨基酸作为重要的手性化学品,其产业化价值日益受到关注。与氨基酸总体市场不同,D-氨基酸属于更小但增长稳定的细分赛道。2024年,D-氨基酸全球市场估值为2.17亿美元,预计到2030年将达到3.018亿美元,2024年至2030年复合年增长率为5.6%[74]。在应用端,D-氨基酸主要服务于医药中间体、精细化学品、功能食品及部分化妆品原料等领域,其中医药相关用途仍是最主要的需求来源。与此同时,我国“十四五”生物经济发展规划将生物制造列为重点方向,强调通过技术创新、产业化和政策支持提升生物制造竞争力,这也为D-氨基酸等高附加值手性化合物的规模化开发提供了政策环境[75]
从制造工艺看,D-氨基酸的传统制备仍主要依赖化学合成、外消旋拆分或单酶催化,但这些方法往往存在步骤多、原子利用率低、底物适应性受限以及环境负担较高等问题[76]。近年来,基于代谢工程、酶工程和多酶级联反应的生物制造技术发展迅速,正在成为D-氨基酸工业生产的核心方向。相关综述指出,当前D-氨基酸生物合成已形成几类主要技术路线,包括消旋酶体系、DAAO/脱氢酶体系、D-酰化酶体系以及多酶级联体系;这些路线的共同目标是提高产率、光学纯度和过程绿色性。与此同时,微生物DAAO已被用于工业生物催化,例如半合成头孢菌素生产中与后续酰化步骤耦联,以及制备高光学纯度氨基酸中间体,说明D-氨基酸相关酶已具有明确的工业应用基础[77]。在产业化技术层面,一类代表性措施是在工程菌中构建由L-氨基酸向D-氨基酸衍生物转化的人工通路,以减少产物毒性并提高光学纯度;另一类更具工业潜力的措施则是直接以葡萄糖等廉价碳源发酵生产D-氨基酸[78-79]。一项以谷氨酸棒杆菌为主的研究,通过优化D-Ala合成模块、削弱副产物生成并引入L-氨基酸脱氨酶,在5 L发酵罐中实现了85 g/L D-Ala、0.30 g/g葡萄糖得率和>99%光学纯度,显示出直接发酵法在成本和工艺集成上的优势[79]。此外,D-氨基酸相关酶的高效表达仍是产业放大的关键瓶颈,例如DAAO在大肠杆菌中的表达会抑制宿主生长;通过共表达过氧化氢酶、优化诱导条件并平衡生物量与酶活性,可将生物量提高至26.03 g/L干细胞重(DCW),DAAO比活提高至390.0 U/g DCW,并已实现至5 000 L的放大验证[80]。此外,多酶级联催化与固定化酶技术因具有高立体选择性、可重复利用和过程稳定性,正逐步成为高附加值D-氨基酸绿色制造的重要补充平台[79]。综上所述,随着合成生物学、代谢工程和酶工程技术的发展,D-氨基酸的生产效率和产业化水平不断提高。系统解析其作用机制并探索其在畜牧生产中的应用策略,将为D-氨基酸在饲料工业中的开发与应用提供重要理论基础。

5 小结与展望

尽管近年来D-氨基酸研究取得了一定进展,其来源、代谢途径及生物学功能仍未得到全面阐明。在畜牧领域,相关研究仍相对有限,D-氨基酸的作用机制及适宜应用剂量仍缺乏系统理论支持。未来研究应重点关注内源性与外源性D-氨基酸的动态平衡及其在不同组织中的代谢流动。同时结合多组学技术与时空动态分析,从整体水平解析D-氨基酸参与的代谢网络,以及其对自噬、氧化应激、免疫炎症和肠道屏障功能等关键生物过程的调控作用。特别是通过整合肠道内容物与微生物群落分析,有望揭示D-氨基酸在宿主-微生物互作中的信号调控和代谢互馈机制。
在应用层面,D-氨基酸的营养调控和健康促进潜力仍有待深入探索。未来可通过将D-氨基酸与益生菌、植物提取物或功能性肽类等天然活性物质协同应用,构建无抗、安全、绿色的营养干预体系,推动其从基础研究向畜禽营养实践转化。总体而言,D-氨基酸研究正处于由“代谢标志物”向“功能分子”转变的关键阶段,其在动物营养与健康养殖领域具有重要的发展前景。

感谢湖南农业大学动物科学技术学院优质家禽生产创新团队给予优渥的试验条件,感谢宋泽和副教授给予宝贵的修改意见。

[1]
FUJII N, TAKATA T, FUJII N, et al. D-amino acids in protein:the mirror of life as a molecular index of aging[J]. Biochimica et Biophysica Acta:Proteins and Proteomics, 2018, 1866(7):840-847.

DOI

[2]
MORISHITA F, MATSUSHIMA O, FURUKAWA Y, et al. Deamidase inactivates a D-amino acid-containing Aplysia neuropeptide[J]. Peptides, 2003, 24(1):45-51.

DOI

[3]
POLLEGIONI L, KUSTRIMOVIC N, PIUBELLI L, et al. D-amino acids:new functional insights[J]. The FEBS Journal, 2025, 292(17):4395-4417.

DOI

[4]
SEKI N, KIMIZUKA T, GONDO M, et al. D-tryptophan suppresses enteric pathogen and pathobionts and prevents colitis by modulating microbial tryptophan metabolism[J]. iScience, 2022, 25(8):104838.

DOI

[5]
高立, 徐飘, 任娇艳. 食品中D-氨基酸的形成机制及生理功能研究进展[J]. 食品科学, 2023, 44(1):256-267.

GAO L, XU P, REN J Y. Progress in research on the formation mechanism and physiological functions of D-amino acids in foods[J]. Food Science, 2023, 44(1):256-267. (in Chinese)

[6]
夏嗣廷, 胡睿智, 贺建华, 等. D-天冬氨酸生理功能及其在畜禽生产中的应用[J]. 动物营养学报, 2019, 31(10):4481-4487.

DOI

XIA S T, HU R Z, HE J H, et al. Physiological function of D-aspartate and its application in animal production[J]. Chinese Journal of Animal Nutrition, 2019, 31(10):4481-4487. (in Chinese)

[7]
SASABE J, MIYOSHI Y, RAKOFF-NAHOUM S, et al. Interplay between microbial D-amino acids and host D-amino acid oxidase modifies murine mucosal defence and gut microbiota[J]. Nature Microbiology, 2016, 1(10):16125.

DOI

[8]
MIYAMOTO T, HOMMA H. D-amino acid metabolism in bacteria[J]. Journal of Biochemistry, 2021, 170(1):5-13.

[9]
YU Y, LIU N H, TENG Z J, et al. Evidence for archaeal metabolism of D-amino acids in the deep marine sediments[J]. Science of the Total Environment, 2024,948:174723.

[10]
DU S Q, WEY M, ARMSTRONG D W. D-amino acids in biological systems[J]. Chirality, 2023, 35(9):508-534.

DOI

[11]
MATSUMOTO M, KUNISAWA A, HATTORI T, et al. Free D-amino acids produced by commensal bacteria in the colonic lumen[J]. Scientific Reports, 2018, 8(1):17915.

DOI

[12]
SIMÓ C, MARTÍN-ALVAREZ P J, BARBAS C, et al. Application of stepwise discriminant analysis to classify commercial orange juices using chiral micellar electrokinetic chromatography-laser induced fluorescence data of amino acids[J]. Electrophoresis, 2004, 25(16):2885-2891.

PMID

[13]
ZENG D N, DEBABOV D, HARTSELL T L, et al. Approved glycopeptide antibacterial drugs:mechanism of action and resistance[J]. Cold Spring Harbor Perspectives in Medicine, 2016, 6(12):a026989.

DOI

[14]
PAPPENHEIMER J R, DAHL C E, KARNOVSKY M L, et al. Intestinal absorption and excretion of octapeptides composed of D-amino acids[J]. Proceedings of the National Academy of Sciences, 1994, 91(5):1942-1945.

DOI

[15]
LEE C J, QIU T A, HONG Z L, et al. Profiling of D-alanine production by the microbial isolates of rat gut microbiota[J]. FASEB Journal, 2022, 36(8):e22446.

DOI

[16]
HATANAKA T, HUANG W, NAKANISHI T, et al. Transport of D-serine via the amino acid transporter ATB0,+ expressed in the colon[J]. Biochemical and Biophysical Research Communications, 2002, 291(2):291-295.

DOI

[17]
QIU T, LEE C J, HUANG C, et al. Biodistribution and racemization of gut-absorbed L/D-alanine in germ-free mice[J]. Communications Biology, 2023, 6(1):851.

DOI

[18]
SAROWER M G, MATSUI T, ABE H. Distribution and characteristics of D-amino acid and D-aspartate oxidases in fish tissues[J]. Journal of Experimental Zoology Part A:Comparative Experimental Biology, 2003, 295(2):151-159.

[19]
KOGA R, MIYOSHI Y, SAKAUE H, et al. Mouse D-amino-acid oxidase:distribution and physiological substrates[J]. Frontiers in Molecular Biosciences, 2017,4:82.

[20]
SAVIGNAC H M, CORONA G, MILLS H, et al. Prebiotic feeding elevates central brain derived neurotrophic factor,N-methyl-D-aspartate receptor subunits and D-serine[J]. Neurochemistry International, 2013, 63(8):756-764.

DOI

[21]
ZHU S J, STEIN R A, YOSHIOKA C, et al. Mechanism of NMDA receptor inhibition and activation[J]. Cell, 2016, 165(3):704-714.

DOI PMID

[22]
YU P, HEGEMAN A D, COHEN J D. A facile means for the identification of indolic compounds from plant tissues[J]. The Plant Journal, 2014, 79(6):1065-1075.

DOI PMID

[23]
POLLEGIONI L, PIUBELLI L, SACCHI S, et al. Physiological functions of D-amino acid oxidases:from yeast to humans[J]. Cellular and Molecular Life Sciences, 2007, 64(11):1373-1394.

DOI

[24]
TISHKOV V I, SHELOMOV M D, POMETUN A A, et al. Physiological role of D-amino acids and bioanalytical potential of D-amino acid oxidases[J]. Moscow University Chemistry Bulletin, 2023, 78(1):1-9.

DOI

[25]
KUO C Y, LIN C H, LANE H Y. Targeting D-amino acid oxidase (DAAO) for the treatment of schizophrenia:rationale and current status of research[J]. CNS Drugs, 2022, 36(11):1143-1153.

DOI

[26]
KATANE M, HOMMA H. D-aspartate oxidase:the sole catabolic enzyme acting on free D-aspartate in mammals[J]. Chemistry & Biodiversity, 2010, 7(6):1435-1449.

DOI

[27]
FURUCHI T, HOMMA H. Free D-aspartate in mammals[J]. Biological & Pharmaceutical Bulletin, 2005, 28(9):1566-1570.

[28]
GUO Y H, FU F Y, HE X, et al. Dietary iron overload exacerbates intestinal damage induced by Eimeria tenella infection in broilers via impaired barrier integrity and gut microbiota dysbiosis[J]. Poultry Science, 2026, 105(5):106664.

DOI

[29]
SASABE J, SUZUKI M. Emerging role of D-amino acid metabolism in the innate defense[J]. Frontiers in Microbiology, 2018,9:933.

[30]
SUZUKI M, SUJINO T, CHIBA S, et al. Host-microbe cross-talk governs amino acid chirality to regulate survival and differentiation of B cells[J]. Science Advances, 2021, 7(10):eabd6480.

[31]
TUINEMA B R, REID-YU S A, COOMBES B K. Salmonella evades D-amino acid oxidase to promote infection in neutrophils[J]. mBio, 2014, 5(6):e01886.

[32]
ABAD S, NAHALKA J, BERGLER G, et al. Stepwise engineering of a Pichia pastoris D-amino acid oxidase whole cell catalyst[J]. Microbial Cell Factories, 2010, 9(1):24.

DOI

[33]
HASHIMOTO A, OKA T, NISHIKAWA T. Anatomical distribution and postnatal changes in endogenous free D-aspartate and D-serine in rat brain and periphery[J]. European Journal of Neuroscience, 1995, 7(8):1657-1663.

DOI

[34]
YASUDA R, HAYASHI Y, HELL J W. CaMKⅡ:a central molecular organizer of synaptic plasticity,learning and memory[J]. Nature Reviews Neuroscience, 2022, 23(11):666-682.

DOI

[35]
ANSARI M, ZHANDI M, KOHRAM H, et al. Improvement of post-thawed sperm quality and fertility of Arian rooster by oral administration of D-aspartic acid[J]. Theriogenology, 2017,92:69-74.

[36]
BURRONE L, RAUCCI F, DI FIORE M M. Steroidogenic gene expression following D-aspartate treatment in frog testis[J]. General and Comparative Endocrinology, 2012, 175(1):109-117.

DOI

[37]
NAZOURI A S, KHOSRAVIFAR M, AKHLAGHI A A, et al. No relationship between most polymorphisms of steroidogenic acute regulatory (StAR) gene with polycystic ovarian syndrome[J]. International Journal of Reproductive Biomedicine, 2015, 13(12):771-778.

[38]
USIELLO A, DI FIORE M M, DE ROSA A, et al. New evidence on the role of D-aspartate metabolism in regulating brain and endocrine system physiology:from preclinical observations to clinical applications[J]. International Journal of Molecular Sciences, 2020, 21(22):8718.

DOI

[39]
ERWAN E, CHOWDHURY V S, NAGASAWA M, et al. Oral administration of D-aspartate,but not L-aspartate,depresses rectal temperature and alters plasma metabolites in chicks[J]. Life Sciences, 2014, 109(1):65-71.

DOI

[40]
HASHIMOTO A, NISHIKAWA T, OKA T, et al. Determination of free amino acid enantiomers in rat brain and serum by high-performance liquid chromatography after derivatization with N-tert-butyloxycarbonyl-L-cysteine and O-phthaldialdehyde[J]. Journal of Chromatography, 1992, 582(1/2):41-48.

DOI

[41]
MOTHET J, PARENT A T, WOLOSKER H, et al. D-serine is an endogenous ligand for the glycine site of the N-methyl-D-aspartate receptor[J]. Proceedings of the National Academy of Sciences, 2000, 97(9):4926-4931.

DOI

[42]
SUWANDHI L, HAUSMANN S, BRAUN A, et al. Chronic D-serine supplementation impairs insulin secretion[J]. Molecular Metabolism, 2018,16:191-202.

[43]
LOCKRIDGE A D, BAUMANN D C, AKHAPHONG B, et al. Serine racemase is expressed in islets and contributes to the regulation of glucose homeostasis[J]. Islets, 2016, 8(6):195-206.

PMID

[44]
HUANG Y Y, WANG Q Y, WANG N, et al. Pediococcus acidilactici PA-1 alleviates diet-induced obesity by modulating hepatic amino acid metabolism and gut microbiota in mice[J]. Probiotics and Antimicrobial Proteins, 2025,18:4746-4767.

[45]
ASAKAWA T, ONIZAWA M, SAITO C, et al. Oral administration of D-serine prevents the onset and progression of colitis in mice[J]. Journal of Gastroenterology, 2021, 56(8):732-745.

DOI

[46]
KIMURA T, SAKAI S, HORIO M, et al. Kinetic analysis of D-alanine upon oral intake in humans[J]. Amino Acids, 2024, 56(1):61.

DOI

[47]
TRIVEDI R R, CROOKS J A, AUER G K, et al. Mechanical genomic studies reveal the role of D-alanine metabolism in Pseudomonas aeruginosa cell stiffness[J]. mBio, 2018, 9(5):e01340-18.

[48]
MAYANK, SIDHU J S, JOSHI G, et al. Structural diversity of D-alanine:D-alanine ligase and its exploration in development of antibacterial agents against the multi-variant bacterial infections[J]. Chemistry Select, 2022, 7(14):e202104373.

[49]
WALSH C T. Enzymes in the D-alanine branch of bacterial cell wall peptidoglycan assembly[J]. The Journal of Biological Chemistry, 1989, 264(5):2393-2396.

DOI

[50]
MOSCOSO M, GARCÍA P, CABRAL M P, et al. A D-alanine auxotrophic live vaccine is effective against lethal infection caused by Staphylococcus aureus[J]. Virulence, 2018, 9(1):604-620.

DOI

[51]
LI F S, WANG X N, FAN X L, et al. Immunogenicity of recombinant-deficient Lactobacillus casei with complementary plasmid expressing alanine racemase gene and core neutralizing epitope antigen against porcine epidemic diarrhea virus[J]. Vaccines, 2021, 9(10):1084.

DOI

[52]
KIM B S, YUN C H, HAN S H, et al. Inhibitory effect of lipoteichoic acid derived from three Lactobacilli on flagellin-induced IL-8 production in porcine peripheral blood mononuclear cells[J]. Probiotics and Antimicrobial Proteins, 2021, 13(1):72-79.

DOI

[53]
KIM K W, KANG S S, WOO S J, et al. Lipoteichoic acid of probiotic Lactobacillus plantarum attenuates poly I:C-induced IL-8 production in porcine intestinal epithelial cells[J]. Frontiers in Microbiology, 2017,8:1827.

[54]
QING H R, HUO X T, HUANG S M, et al. Bacillus subtilis ANSB168 producing D-alanyl-D-alanine carboxypeptidase could alleviate the immune injury and inflammation induced by ochratoxin A[J]. International Journal of Molecular Sciences, 2021, 22(21):12059.

DOI

[55]
PALEGO L, BETTI L, ROSSI A, et al. Tryptophan biochemistry:structural,nutritional,metabolic,and medical aspects in humans[J]. Journal of Amino Acids, 2016, 2016(1):8952520.

[56]
NOTARANGELO F M, WANG X D, HORNING K J, et al. Role of D-amino acid oxidase in the production of kynurenine pathway metabolites from D-tryptophan in mice[J]. Journal of Neurochemistry, 2016, 136(4):804-814.

DOI

[57]
XIE L, MAEDA J, KUMATA K, et al. Development of 1-N-11C-methyl-L-and-D-tryptophan for pharmacokinetic imaging of the immune checkpoint inhibitor 1-methyl-tryptophan[J]. Scientific Reports, 2015, 5(1):16417.

DOI

[58]
NGUYEN L P, HSU E L, CHOWDHURY G, et al. D-amino acid oxidase generates agonists of the aryl hydrocarbon receptor from D-tryptophan[J]. Chemical Research in Toxicology, 2009, 22(12):1897-1904.

DOI

[59]
KEPERT I, FONSECA J, MÜLLER C, et al. D-tryptophan from probiotic bacteria influences the gut microbiome and allergic airway disease[J]. The Journal of Allergy and Clinical Immunology, 2017, 139(5):1525-1535.

DOI PMID

[60]
GHOSH S, QURESHI A, PUROHIT H. D-tryptophan governs biofilm formation rates and bacterial interaction in P. mendocina and S. aureus[J]. Journal of Biosciences, 2019, 44(1):3.

DOI

[61]
MORRISON W D, HAMILTON T S, SCOTT H M. Utilization of D-tryptophan by the chick[J]. The Journal of Nutrition, 1956, 60(1):47-63.

DOI

[62]
SUGAHARA M, MORIMOTO T, KOBAYASHI T, et al. The nutritional value of D-amino acid in the chick nutrition[J]. Agricultural and Biological Chemistry, 1967, 31(1):77-84.

DOI

[63]
MOGHIMANI M, NOORI S M A, AFSHARI A, et al. D-tryptophan,an eco-friendly natural,safe,and healthy compound with antimicrobial activity against food-borne pathogens:a systematic review[J]. Food Science & Nutrition, 2024, 12(5):3068-3079.

DOI

[64]
TOMONAGA S, FURUSE M. Nutritional characteristics and functions of D-amino acids in the chicken[J]. The Journal of Poultry Science, 2020, 57(1):18-27.

DOI

[65]
FINDRIK Z, VASIĆ-RACKI D. Biotransformation of D-methionine into L-methionine in the cascade of four enzymes[J]. Biotechnology and Bioengineering, 2007, 98(5):956-967.

DOI

[66]
QI L, YANG Z P, MIAO Y Y, et al. Effects of methionine restriction and methionine hydroxy analogs on intestinal inflammation and physical barrier function in mice[J]. Journal of Future Foods, 2025, 5(1):68-78.

DOI

[67]
CAPARRÓS M, PISABARRO A G, DE PEDRO M A. Effect of D-amino acids on structure and synthesis of peptidoglycan in Escherichia coli[J]. Journal of Bacteriology, 1992, 174(17):5549-5559.

DOI

[68]
LAM H, OH D C, CAVA F, et al. D-amino acids govern stationary phase cell wall remodeling in bacteria[J]. Science, 2009, 325(5947):1552-1555.

DOI PMID

[69]
CAVA F, LAM H, DE PEDRO M A, et al. Emerging knowledge of regulatory roles of D-amino acids in bacteria[J]. Cellular and Molecular Life Sciences, 2011, 68(5):817-831.

DOI

[70]
LIU G C, MAGNUSON A D, SUN T, et al. Supplemental methionine exerted chemical form-dependent effects on antioxidant status,inflammation-related gene expression,and fatty acid profiles of broiler chicks raised at high ambient temperature[J]. Journal of Animal Science, 2019, 97(12):4883-4894.

DOI

[71]
张致平. DL-蛋氨酸、L-蛋氨酸和蛋氨酸羟基类似物钙盐在肉鸡上的相对生物学效价及其抗氧化功能的研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学,2015:1-2.

ZHANG Z P. Nutritional values of DL-methionine, L-methionine and methionine hydroxy analogue calcium sal in broilers and their antioxidant functions[D]. Master’s Thesis. Yangling: Northwest A&F University,2015:1-2. (in Chinese)

[72]
ELSHERBENI A I, ALDHALMI A K, YOUSSEF I M, et al. The role of trimethylglycine (betaine) as an anti-heat stress agent in sustainable poultry production:enhancing growth,stress resilience,and nutrient utilization[J]. Journal of Thermal Biology, 2025,130:104152.

[73]
CAPARRÓS M, ARÁN V, DE PEDRO M A. Incorporation of S-[ 3H]methyl-D-cysteine into the peptidoglycan of ether-treated cells of Escherichia coli[J]. FEMS Microbiology Letters, 1992, 72(2):139-146.

[74]
Market Glass,Inc.. Amino acids-global strategic business report[R]. [S.l.]:[s. n.], 2026.

[75]
中华人民共和国国家发展改革委. 关于印发《“十四五”生物经济发展规划》的通知[EB/OL].(2021-12-20)[2025-10-07]. https://www.gov.cn/zhengce/zhengceku/2022-05/10/content_5689556.htm.

National Development and Reform Commission. Notice on issuing the “14th five-year plan for the development of the biotechnology industry”[EB/OL].(2021-12-20)[2025-10-07]. https://www.gov.cn/zhengce/zhengceku/2022-05/10/content_5689556.htm. (in Chinese)

[76]
LEE H, KIM D, KIM S, et al. Conversion of racemic unnatural amino acids to optically pure forms by a coupled enzymatic reaction[J]. Molecules, 2021, 26(5):1274.

DOI

[77]
JIANG M R, JIA X, YANG L C. Applications and synthesis of D-amino acids[J]. Chinese Journal of Biotechnology, 2025, 41(11):4157-4178.

[78]
BI Y Q, WANG J Y, LI J L, et al. Engineering acetylation platform for the total biosynthesis of D-amino acids[J]. Metabolic Engineering, 2023,80:25-32.

[79]
TIAN S Y, ZHAO G H, LV G C, et al. Efficient fermentative production of D-alanine and other D-amino acids by metabolically engineered Corynebacterium glutamicum[J]. Journal of Agricultural and Food Chemistry, 2024, 72(14):8039-8051.

DOI

[80]
XU J M, CAO H T, WANG M, et al. Development of a combination fermentation strategy to simultaneously increase biomass and enzyme activity of D-amino acid oxidase expressed in Escherichia coli[J]. Applied Biochemistry and Biotechnology, 2021, 193(7):2029-2042.

DOI

Outlines

/