RESEARCH PAPER

Research on Characteristics of Mucin Glycosylation in Different Intestinal Segments of 50-Day-Old Piglets and Intervention Effects of Pine Polyphenols

  • WANG Yuxuan ,
  • ZHU Huilun ,
  • GU Jiong ,
  • YANG Xia ,
  • LIU Ming ,
  • XIA Bing , *
Expand
  • Beijing Key Laboratory of Efficient Protein Synthesis and Intelligent Biomanufacturing, College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
* associate professor, E-mail:

Received date: 2025-09-05

  Online published: 2026-07-14

Abstract

This experiment aimed to investigate spatial distribution characteristics of mucin glycosylation modifications in different intestinal segments (duodenum, jejunum, ileum, cecum and colon) of 50-day-old piglets and their association with intestinal barrier function, as well as to explore effects of pine polyphenols (PP) on sialylation glycosylation modification in piglet ileum. In experiment 1, eight healthy weaned piglets (Duroc × Landrace × Yorkshire) at 22 days of age were selected, raised to 50 days of age, and then slaughtered for sampling. In experiment 2, forty-eight healthy weaned piglets (Duroc × Landrace × Yorkshire) at 24 days of age were randomly divided into three groups, with eight replicates per group and two piglets per replicate. CON group was fed a basal diet and intraperitoneal injection of normal saline; lipopolysaccharide (LPS) group was fed a basal diet and intraperitoneal injection of 100 μg/kg BW LPS; PP group was fed a basal diet supplemented with 500 mg/kg PP and intraperitoneal injection of 100 μg/kg BW LPS. On day 28 of the experiment, intraperitoneal injections of LPS or normal saline were administered, and the piglets were slaughtered 4 h later for sampling. The results showed as follows: 1) jejunal villus height was significantly higher than that in the duodenum and ileum (P<0.05), and ileal villus height was the lowest; the crypt depth in the cecum and colon was significantly greater than that in the small intestinal segments (P<0.05); the jejunal villus height/crypt depth ratio was the highest, significantly higher than that in the duodenum and ileum (P<0.05), and the lowest value was observed in the ileum; goblet cell number in the jejunum was significantly higher than that in the duodenum and ileum (P<0.05). 2) Among mucin-related genes, the mRNA relative expression level of resistin like beta (RETNLB) gene in the jejunum was significantly higher than that in other intestinal segments (P<0.05); the mRNA relative expression level of anterior gradient protein 2 (AGR2) gene in the colon was significantly higher than that in the ileum and cecum (P<0.05); the mRNA relative expression level of trefoil factor 3 (TFF3) gene in the ileum was significantly lower than that in the duodenum and jejunum (P<0.05); the mRNA relative expression level of mucin 4 (MUC4) gene in the jejunum and ileum was significantly lower than that in other intestinal segments (P<0.05). 3) Among Tn antigen-related genes, the mRNA relative expression level of N-acetylgalactosaminyltransferase 12 (GALNT12) gene in the colon and cecum was significantly higher than that in other segments (P<0.05); among core structure modification-related genes, the mRNA relative expression level of N-acetylglucosaminyltransferase 2 (GCNT2) gene in the jejunum was significantly higher than that in other segments (P<0.05), the mRNA relative expression level of N-acetylglucosaminyltransferase 1 (GCNT1) gene in the colon was significantly higher than that in the duodenum, jejunum and ileum (P<0.05), and the mRNA relative expression level of core 1 synthase (C1GALT1) gene in the colon was significantly higher than that in the jejunum, ileum and cecum (P<0.05); among terminal structure modification-related genes, the mRNA relative expression level of β-galactoside α-2,6-sialyltransferase 1 (ST6GAL1) gene in the ileum was significantly higher than that in other segments (P<0.05), and the mRNA relative expression level of β-1,4-galactosyltransferase 4 (B4GALT4) gene in the colon was significantly higher than that in other segments (P<0.05). 4) Compared with LPS group, dietary supplementation with PP significantly increased the mRNA relative expression levels of β-galactoside α-2,3-sialyltransferase 1 (ST3GAL1), β-galactoside α-2,3-sialyltransferase 3 (ST3GAL3) and ST6GAL1 genes in the ileum of piglets (P<0.05). In conclusion, there are significant segment-specific characteristics of intestinal mucin glycosylation modifications in piglets: the jejunum is characterized by a high number of goblet cells and core structure modifications, which are beneficial for mucus barrier formation; the ileum predominantly exhibits sialylation modifications; and the colon is enriched in core extension and terminal structure modifications. Dietary supplementation with PP can regulate sialylation glycosylation modification in the ileum of piglets.

Cite this article

WANG Yuxuan , ZHU Huilun , GU Jiong , YANG Xia , LIU Ming , XIA Bing . Research on Characteristics of Mucin Glycosylation in Different Intestinal Segments of 50-Day-Old Piglets and Intervention Effects of Pine Polyphenols[J]. Chinese Journal of Animal Nutrition, 2026 , 38(7) : 4982 -4996 . DOI: 10.12418/CJAN2026.399

猪的胃肠道(gastrointestinal tract,GIT)是一条始于口腔终于肛门的连续性管道系统,其中,肠道划分为小肠(十二指肠、空肠和回肠)和大肠(盲肠、结肠和直肠),是营养物质吸收的主要场所。小肠是猪消化和吸收营养物质的重要部分[1],十二指肠分泌消化酶和碱性黏液启动蛋白质、脂肪与碳水化合物的分解;空肠密布绒毛与微绒毛,吸收分解后的单糖、氨基酸及脂肪酸;回肠末端以褶皱和集合淋巴小结进一步吸收残余养分并启动黏膜免疫[2]。大肠则通过结肠段吸收水分、电解质和少量挥发性脂肪酸,形成半固体粪便;其发达的微生物群发酵未消化纤维生成短链脂肪酸供能,同时分泌黏蛋白构成化学屏障,抑制病原菌定植,最终经直肠排出残渣,完成整个消化与防御过程[2]
肠道黏膜屏障是维持猪肠道稳态、保障营养物质高效消化吸收的关键结构,其功能障碍会造成肠道吸收能力下降、免疫力降低、生长迟缓等,严重时甚至会导致死亡,给养猪业带来严重经济损失[3-4]。在肠道屏障的多层防御体系中,黏液屏障构成第1道物理防线,其中黏蛋白糖基化修饰的生物学特性对屏障功能具有核心调控意义。黏蛋白(mucin,MUC)是一类高度糖基化的蛋白质,其O-糖基化水平高达80%[5]。黏蛋白的O-糖基化修饰可稳定黏蛋白多聚体结构,限制病原体穿透[6];硫酸化糖链可通过增强黏液层电荷密度,提升抗菌肽的滞留与活性[7]。Bergstrom等[8]研究发现,核心Ⅰ型O-糖基化缺失可导致自发性结肠炎,表明糖基化修饰是维持屏障完整性的分子基础。
然而,黏蛋白糖基化修饰存在空间特异性。研究表明,不同肠段因生理功能差异,其黏液层结构与糖基化模式呈现动态变化:以营养吸收为主要功能的小肠段,其黏液层相对较薄且为单层通透结构,便于营养物质的快速转运;而回肠作为免疫感应活跃区,其黏蛋白表现出高唾液酸化特征;在微生物大量定植的结肠,则形成致密的双层黏液结构,且黏蛋白的硫酸化修饰尤为显著,这对于维持菌群稳态和抵御有害代谢产物至关重要[9-10]。当前的研究多集中于人类或小鼠模型,且缺乏对仔猪这一重要经济动物的系统性比较。仔猪肠道发育中杯状细胞数量、黏蛋白分泌颗粒及紧密连接结构随日龄显著变化,但各肠段糖基化修饰的动态分布规律尚未阐明。因此,本研究通过对仔猪不同肠段黏蛋白糖基化修饰的系统比较分析,探索其在肠道屏障功能中的作用,并探究松多酚(pine polyphenols,PP)对仔猪回肠唾液酸糖基化修饰的影响,以期为仔猪肠道健康的营养调控提供理论依据。

1 材料与方法

1.1 试验材料

试验所用PP是以云南松树皮为原料,通过乙醇法提取而来。

1.2 伦理声明

本次动物试验经过北京农学院实验动物福利与伦理委员会批准,批准编号:BUA2023028。

1.3 试验设计

试验1:选取8头初始体重为(5.88±0.29) kg的22日龄“杜×长×大”健康断奶仔猪,公母各占1/2,饲喂相同的基础饲粮,饲养到50日龄时屠宰取样。基础饲粮按照NRC(2012)饲养标准进行配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
乳猪玉米Corn for suckling piglets 28.98
膨化玉米Extruded corn 15.00
碎大米Broken rice 15.00
膨化大豆Expanded soybean 13.00
乳清粉Whey powder 8.00
豆粕Soybean meal (46%) 4.50
葡萄糖Glucose 4.00
鱼粉Fish meal 3.00
小麦水解蛋白Hydrolyzed wheat protein 3.00
大豆油Soybean oil 1.50
甲酸钙Calcium formate 0.80
蒙脱石Montmorillonite 0.50
磷酸二氢钙Ca(H2PO4)2 0.50
L-赖氨酸盐酸盐L-Lys·HCl 0.65
L-苏氨酸L-Thr 0.24
DL-蛋氨酸DL-Met 0.16
L-色氨酸L-Trp 0.07
乙氧基喹啉Ethoxyquin 0.10
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
净能NE/(MJ/kg) 10.96
粗蛋白质CP 17.39
钙Ca 0.69
总磷TP 0.54
赖氨酸Lys 1.23
蛋氨酸Met 0.57
苏氨酸Thr 0.90
胱氨酸Cys 0.26

1)预混料为每千克饲粮提供 The premix provides the following per kg of the diet:VA 15 000 IU,VD3 4 500 IU,VE 72.5 mg,VK3 4.5 mg,VB1 4.32 mg,VB2 12 mg,VB6 4.86 mg,VB12 30 μg,生物素 biotin 480 μg,叶酸 folic acid 1.764 mg,泛酸钙 calcium pantothenate 19.32 mg,烟酰胺 nicotinamide 41.58 mg,Cu 110 mg,Fe 165 mg,Zn 80 mg,Mn 60 mg,I 0.8 mg,Co 0.6 mg,Se 0.3 mg。

2)净能和粗蛋白质为计算值,其余营养水平为实测值。NE and CP are calculated values, while the other nutrient levels are measured values.

试验2:选取体重[(5.88±0.10) kg]相近的24日龄“杜×长×大”健康断奶仔猪48头,公母各占1/2,随机分为3组,每组8个重复,每个重复2头仔猪。对照组(CON组)饲喂基础饲粮,腹腔注射生理盐水;脂多糖(lipopolysaccharides,LPS)组饲喂基础饲粮,腹腔注射100 μg/kg BW LPS;PP组饲喂基础饲粮+500 mg/kg PP,腹腔注射100 μg/kg BW LPS。试验第28天腹腔注射LPS或生理盐水,4 h后屠宰取样。基础饲粮同试验1,仔猪自由采食和饮水。

1.4 饲养管理

饲养管理严格遵循猪场的生物安全规范。在试验开始前,对猪舍及舍内料槽和水槽进行全面清洗与消毒,并调控舍内环境,使温度、相对湿度、通风及光照条件均按照猪场常规管理进行。试验期间仔猪均在相同饲养管理条件下自由采食和饮水。

1.5 样本采集

试验1:50日龄时,8头仔猪体重达到(16.52±1.27) kg,经麻醉后屠宰,分别剪取0.5~1.0 cm的十二指肠、空肠、回肠、盲肠及结肠样本,经4%多聚甲醛固定用于苏木精-伊红(HE)染色,经卡诺氏固定液固定用于阿利新蓝-过碘酸-雪夫(AB-PAS)染色;采集各肠段黏膜,分装于冻存管中,用于后续相关基因表达量测定。
试验2:试验第28天,分别对3组仔猪经腹腔注射LPS或等量生理盐水,4 h后每个重复随机选择1头猪,每组8头,麻醉后进行屠宰,采集回肠黏膜分装于冻存管,用于后续相关基因表达量测定。

1.6 指标测定与方法

1.6.1 肠道组织形态观察

1.6.1.1 HE染色

取出试验1中4%多聚甲醛固定的十二指肠、空肠、回肠、盲肠、结肠样本,经脱水、透明、包埋、冷却凝固和修正后制成包埋蜡块,再依次经过切片、漂浮和烤片制成切片,切片经HE染色后,用显微镜观察并测定不同肠段的绒毛高度和隐窝深度,计算绒毛高度/隐窝深度。

1.6.1.2 AB-PAS染色

将试验1中置于卡诺氏固定液的十二指肠、空肠、回肠、盲肠、结肠样本固定48 h,经修剪后对组织块进行梯度酒精脱水、透明、包埋。制备5 μm的石蜡切片,切片经二甲苯脱蜡,梯度酒精逐级复水,过碘酸酒精处理10 min,自来水冲洗10 min, Schiff氏液处理10 min,自来水冲洗5 min;苏木精染核3 min,自来水冲洗5 min,1%盐酸酒精分色2 s,自来水蓝化10 min,常规脱水、透明,中性树胶封片,待切片晾干后,显微镜下拍照,观察杯状细胞并计数。

1.6.2 肠道组织中基因表达测定

用总RNA提取试剂提取试验1中十二指肠、空肠、回肠、盲肠、结肠黏膜的总RNA与试验2中回肠黏膜的总RNA,测定浓度和纯度合格后进行反转录,通过实时荧光定量PCR(RT-qPCR)仪(LightCycler® 96 Instrument,Roche,瑞士)进行相对定量分析。引物由生工生物工程(上海)股份有限公司合成,引物序列见表2。PCR反应体系:5 μL 2×SYBR Green Pro Taq HS Premix 2,上、下游引物各0.2 μL,3.6 μL RNase-Free ddH2O,1 μL样本cDNA。运行程序:预变性95 ℃持续30 s;然后进行两步法反应,95 ℃变性持续5 s,60 ℃退火持续30 s,45个循环。熔解曲线程序:95 ℃持续10 s,65 ℃持续60 s,97 ℃持续15 s。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
登录号
Accession number
引物序列
Primer sequences (5'—3')
甘油醛-3-磷酸脱氢酶
GAPDH
XM_021091114.1 F:GGGCATGAACCATGAGAAGT
R:TGTGGTCATGAGTCCTTCCA
抵抗素样β
RETNLB
XM_005670236.3 F:CTGACCAGTCTTTGCAGACCT
R:CACTGAGAACCCCTTGCGAT
前梯度蛋白2
AGR2
XM_005667660.3 F:AGCTCCTCCCTCTGTGTTAGG
R:TGAGTATGTTCACCAGTGCCTT
内质网至核信号转导蛋白2
ERN2
XM_021086463.1 F:TTCTGCTCTCTCACAGGATGC
R:TGGTCTTGCTCTGAGGGGTT
内质网至核信号转导蛋白1
ERN1
XM_005668695.3 F:GCGAAGCATGTGCTGAAACA
R:TATCCGGTCACTCACGTCCT
三叶因子3
TFF3
NM_001243483.1 F:GGGAAAAAGCTCCCTGGCTA
R:TCAAGGGTCACGGAAAGTGG
黏蛋白4
MUC4
XM_021068274.1 F:TTCACTCCAACCATCCTTCCA
R:CTCGTTCCACTTGTCTGTTCC
黏蛋白2
MUC2
XM_021082584.1 F:GGCCGACAACAAGAAGAACG
R:GATGGAGAAGCTCGCTGTCA
N-乙酰半乳糖胺α-2,6-唾液酸转移酶4
ST6GALNAC4
NM_213784.1 F:CATGGCAACCTTTGCACTCT
R:GACCTGGTGTTCACTGGGAG
N-乙酰半乳糖胺α-2,6-唾液酸转移酶1
ST6GALNAC1
XM_021066570.1 F:ATGGGCCGGGAGATAGA
R:CAGGGAGAAGGCGGTAAA
N-乙酰半乳糖氨基转移酶12
GALNT12
XM_021066576.1 F:GTGGTTCTTGGAGACCGTGT
R:CCCATTGCTGTGATGAAGGTC
N-乙酰半乳糖氨基转移酶8
GALNT8
XM_013988444.2 F:CTGATGGAGCCCTCATTGCT
R:GCCTCAGGGGTGTACTTGTG
N-乙酰半乳糖氨基转移酶7
GALNT7
XM_021072437.1 F:CTGACCCCTCGAGAGAAGAGA
R:GTTCTCACCGCCCCAAATCT
N-乙酰半乳糖氨基转移酶5
GALNT5
XM_021075050.1 F:ACGGATGCTCTGCTGTGAAA
R:GCAGTCCAAGGGGAGAGTTC
N-乙酰半乳糖氨基转移酶3
GALNT3
XM_021075048.1 F:TAAGTCCTGGTTTCGGGTGTG
R:ATGGTGGGGTTTGCCATTGT
N-乙酰半乳糖氨基转移酶2
GALNT2
XM_001927774.6 F:ATGCAGATGTTCCTTCCCTCA
R:CCCATTGCTGTGATGAAGGTC
N-乙酰半乳糖氨基转移酶1
GALNT1
XM_021096269.1 F:GAGCCCAGTGATGGATGGAT
R:GGGAACACTTGGCCTTTCAG
β-1,3-N-乙酰葡糖胺转移酶6
B3GNT6
XM_021062552.1 F:CTGGAGTGTTGTCCAGCCAT
R:AGCTAAGGAGCAGCGTCAAG
N-乙酰氨基葡萄糖转移酶3
GCNT3
XM_021094516.1 F:TCAAGAAGAAGCGGAAGC
R:TAGAGTATGCGATGGGGAA
N-乙酰氨基葡萄糖转移酶2
GCNT2
XM_063259868.1 F:ACGTCCACGGCATCTGTATC
R:GCATTCCACGGTAAGAGGGT
N-乙酰氨基葡萄糖转移酶1
GCNT1
XM_021065082.1 F:CGACAAAACACATCCTCCT
R:TGCCCACTCCATAAACTTC
特异性伴侣1
C1GALT1C1
XM_003135326.5 F:ATCCACAAGCAAGCAGCAAAG
R:GTGTATGATGAGGAACGCCACT
核心1合酶
C1GALT1
XM_021063389.1 F:GAGAGGAGGCTGATGTCAGAAATA
R:GGATGTCACTCTGTTCACCCA
岩藻糖基转移酶2
FUT2
NM_214069.1 F:CAATTACACGCTCCCGGACT
R:CCAGCCGACATCAGTGCTTA
岩藻糖基转移酶1
FUT1
NM_214068.2 F:CCCATATCGTGCCTCTTGCT
R:CCAGGCCATGGGCTACATAC
半乳糖-3-O-磺基转移酶2
GAL3ST2
XM_021074665.1 F:GAAAGTCATGCCCAACGACAC
R:GGAGGACTCGAGCTGGAAGA
半乳糖-3-O-磺基转移酶1
GAL3ST1
XM_005670826.3 F:AGGGACATGCCACCTGCTAT
R:CACTGGGAAACAGGAACGCT
β-半乳糖苷α-2,6-唾液酸转移酶1
ST6GAL1
XM_021070035.1 F:CACCGCAAACCCTTCGGA
R:ACTCTGCCTTTTAAACGTGTCTG
β-半乳糖苷α-2,3-唾液酸转移酶3
ST3GAL3
NM_213759.1 F:TGTCCTCGCCAACAAGTCTC
R:GGGGTAGGTGATGCGTAGTG
β-半乳糖苷α-2,3-唾液酸转移酶1
ST3GAL1
NM_001004047.1 F:GCCTCAGATAGACAGCCACG
R:GGGTACACGAAATGGTGGGT
β-1,3-半乳糖基转移酶5
B3GALT5
XM_021070992.1 F:TCCAAGCAGACGTTCTTCCC
R:AGGTCTTGAGGCTTGACGTG
β-1,4-半乳糖基转移酶7
B4GALT7
NM_001168422.1 F:CTACCAGCTGTGCAATGGGA
R:GCAGGTGGCGAAAAGTCTTG
β-1,4-半乳糖基转移酶6
B4GALT6
XM_003127886.5 F:TTCCGTAACCGCCATGAACA
R:TTGCACGGTTAAAAGGCTGC
β-1,4-半乳糖基转移酶5
B4GALT5
XM_003134490.5 F:TTGGCACAGGGTGCATAGAG
R:CAAACCCTTCCAGAGGGCAT
β-1,4-半乳糖基转移酶4
B4GALT4
XR_001300547.2 F:GGCAGAAAACCCCAAAG
R:GGTGAGGAATCAGGATGG
β-1,4-半乳糖基转移酶3
B4GALT3
XM_013996834.2 F:GATAAGTGCCCGCGTTCCTA
R:GATCGCTGGGTCTGTGGAC
β-1,4-半乳糖基转移酶2
B4GALT2
XM_021096829.1 F:CCCGCAGAGGTTTACCAAGA
R:CGCCCAATGTCCACTGTGAT
β-1,4-半乳糖基转移酶1
B4GALT1
XM_003130680.4 F:CGACGTGGACCTCATTCCAA
R:TACAGAAATGTGCCGTGGCT
β-1,3-N-乙酰葡糖胺转移酶3
B3GNT3
XM_003123499.4 F:CACCGCTTCTTGCCCTAT
R:GTGGAGATGGGAGCCTTG

1.7 数据统计分析

试验数据首先经过Excel 2019处理,之后采用Graphpad Prism 10.4软件进行单因素方差分析(one-way ANOVA),并用Tukey’s法进行多重比较检验。使用R Studio作图,P<0.05表示差异显著。

2 结果

2.1 仔猪不同肠段肠道组织形态和上皮屏障比较

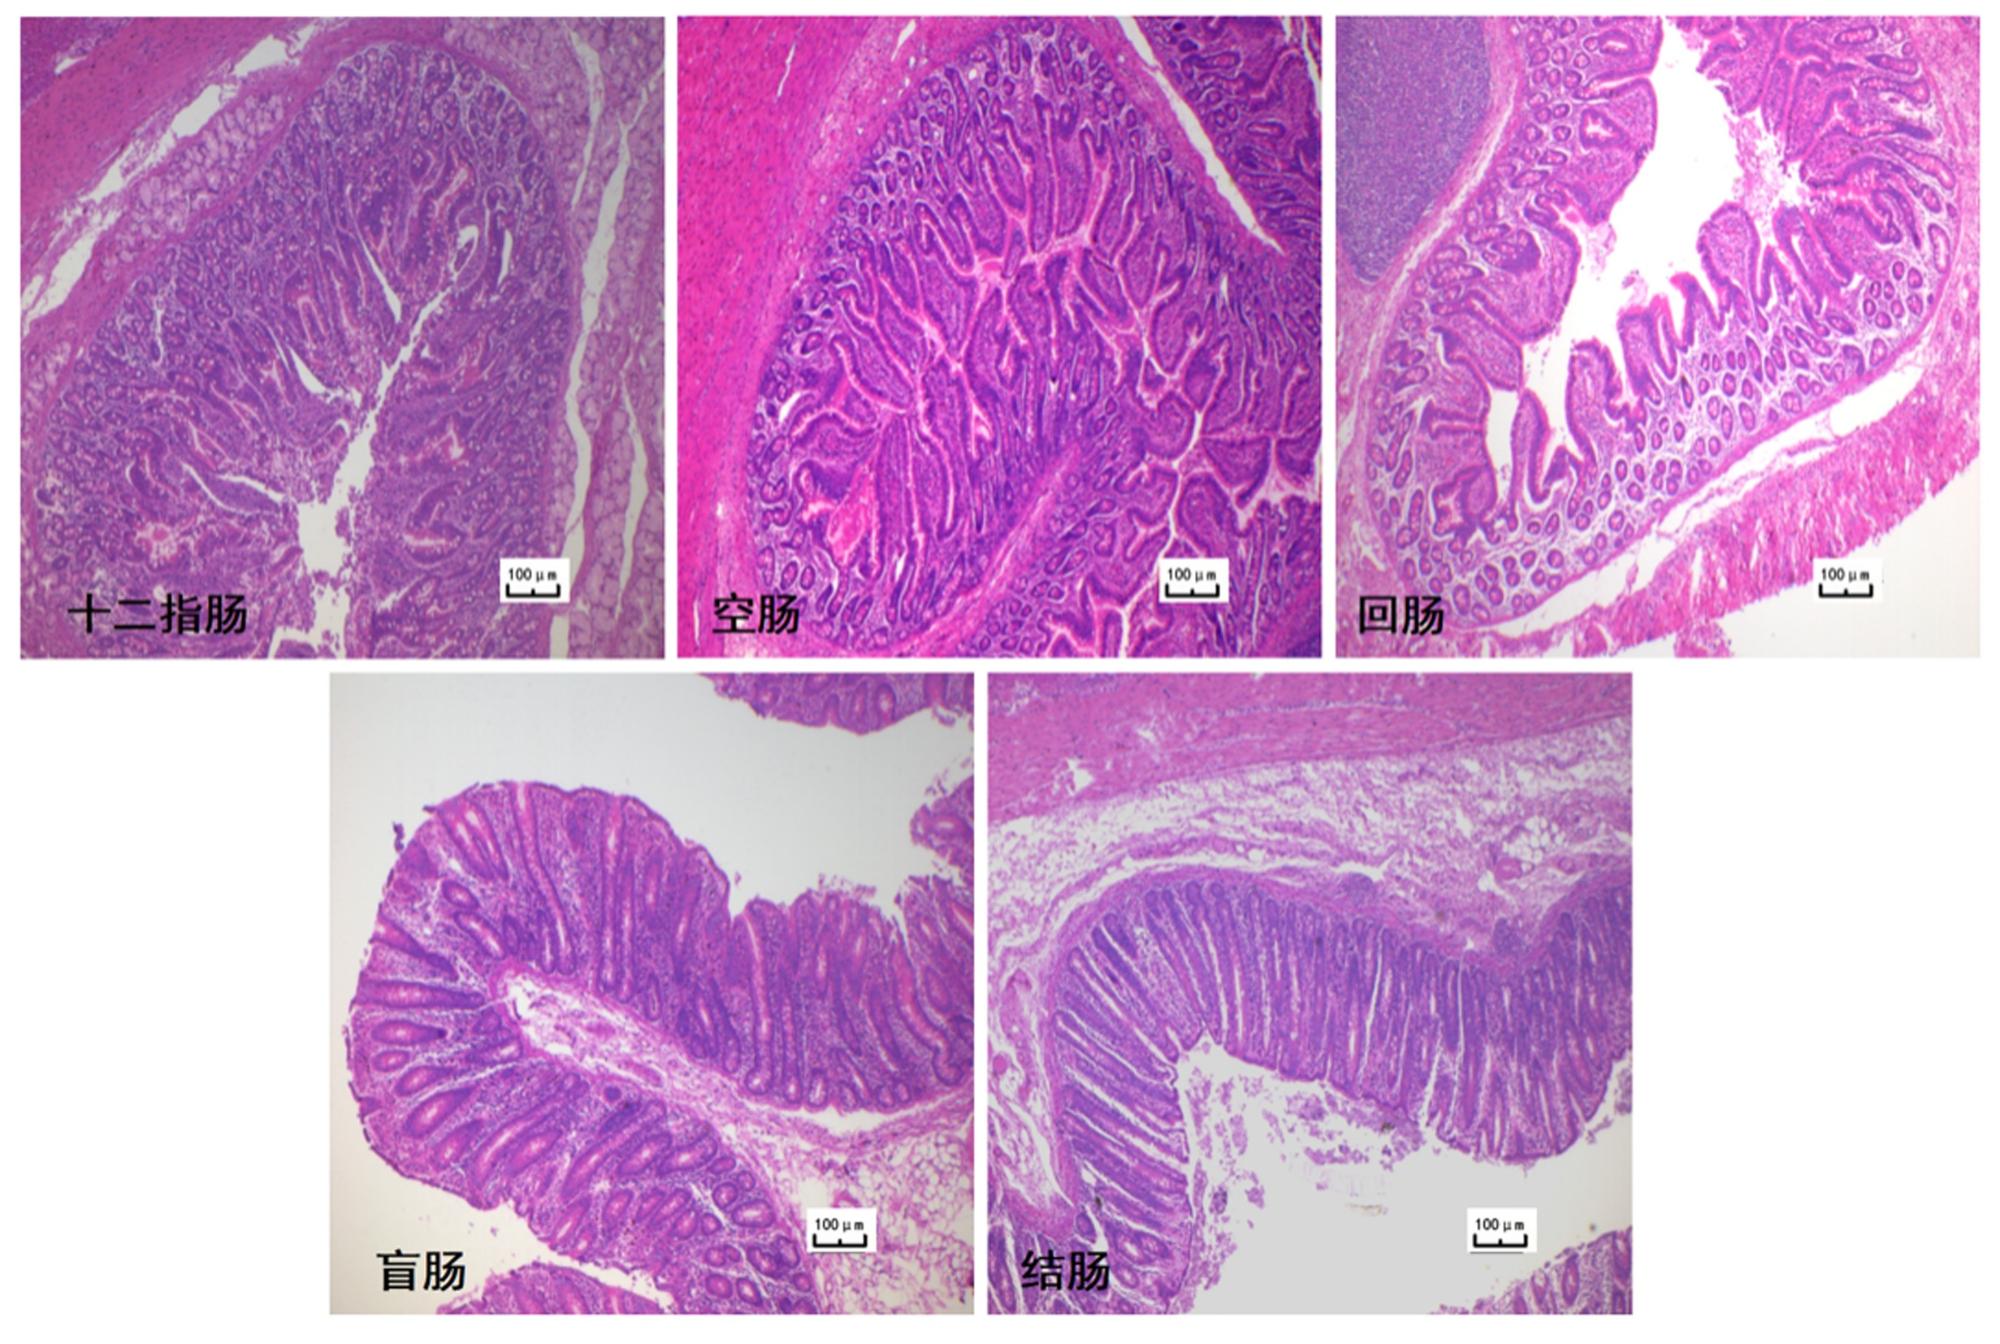
图1所示,十二指肠、空肠、回肠黏膜表面布满绒毛和隐窝,空肠绒毛最高、呈指状,回肠绒毛较细且短,盲肠和结肠无绒毛;结肠和盲肠的隐窝深度明显大于空肠、回肠和十二指肠。如表3所示,空肠绒毛高度显著高于十二指肠和回肠(P<0.05),回肠绒毛高度显著低于十二指肠和空肠(P<0.05);不同肠段的隐窝深度有显著差异(P<0.05),空肠、回肠、十二指肠、结肠和盲肠的隐窝深度依次显著升高(P<0.05);空肠的绒毛高度/隐窝深度显著高于十二指肠(P<0.05),回肠的绒毛高度/隐窝深度显著低于十二指肠(P<0.05)。
图1 仔猪不同肠段肠道组织形态

Fig.1 Intestinal tissue morphology in different intestinal segments of piglets

表3 仔猪不同肠段肠道组织上皮屏障比较

Table 3 Comparison of intestinal tissue epithelial barriers in different intestinal segments of piglets

项目
Items
十二指肠
Duodenum
空肠
Jejunum
回肠
Ileum
盲肠
Cecum
结肠
Colon
均值标准误
SEM
P
P-value
绒毛高度Villus height/μm 215.78b 229.58a 163.97c NA NA 3.216 <0.001
隐窝深度Crypt depth/μm 122.54c 96.64e 109.14d 259.93a 223.48b 1.349 <0.001
绒毛高度/隐窝深度V/C 1.76b 2.37a 1.50c NA NA 0.017 <0.001
杯状细胞数量
Goblet cell number/(个/100 μm)
20.50bc 24.83a 19.00c 22.17abc 24.33ab 0.975 0.001

NA:不适用

Not applicable。

2.2 仔猪不同肠段杯状细胞数量及黏蛋白相关基因表达比较

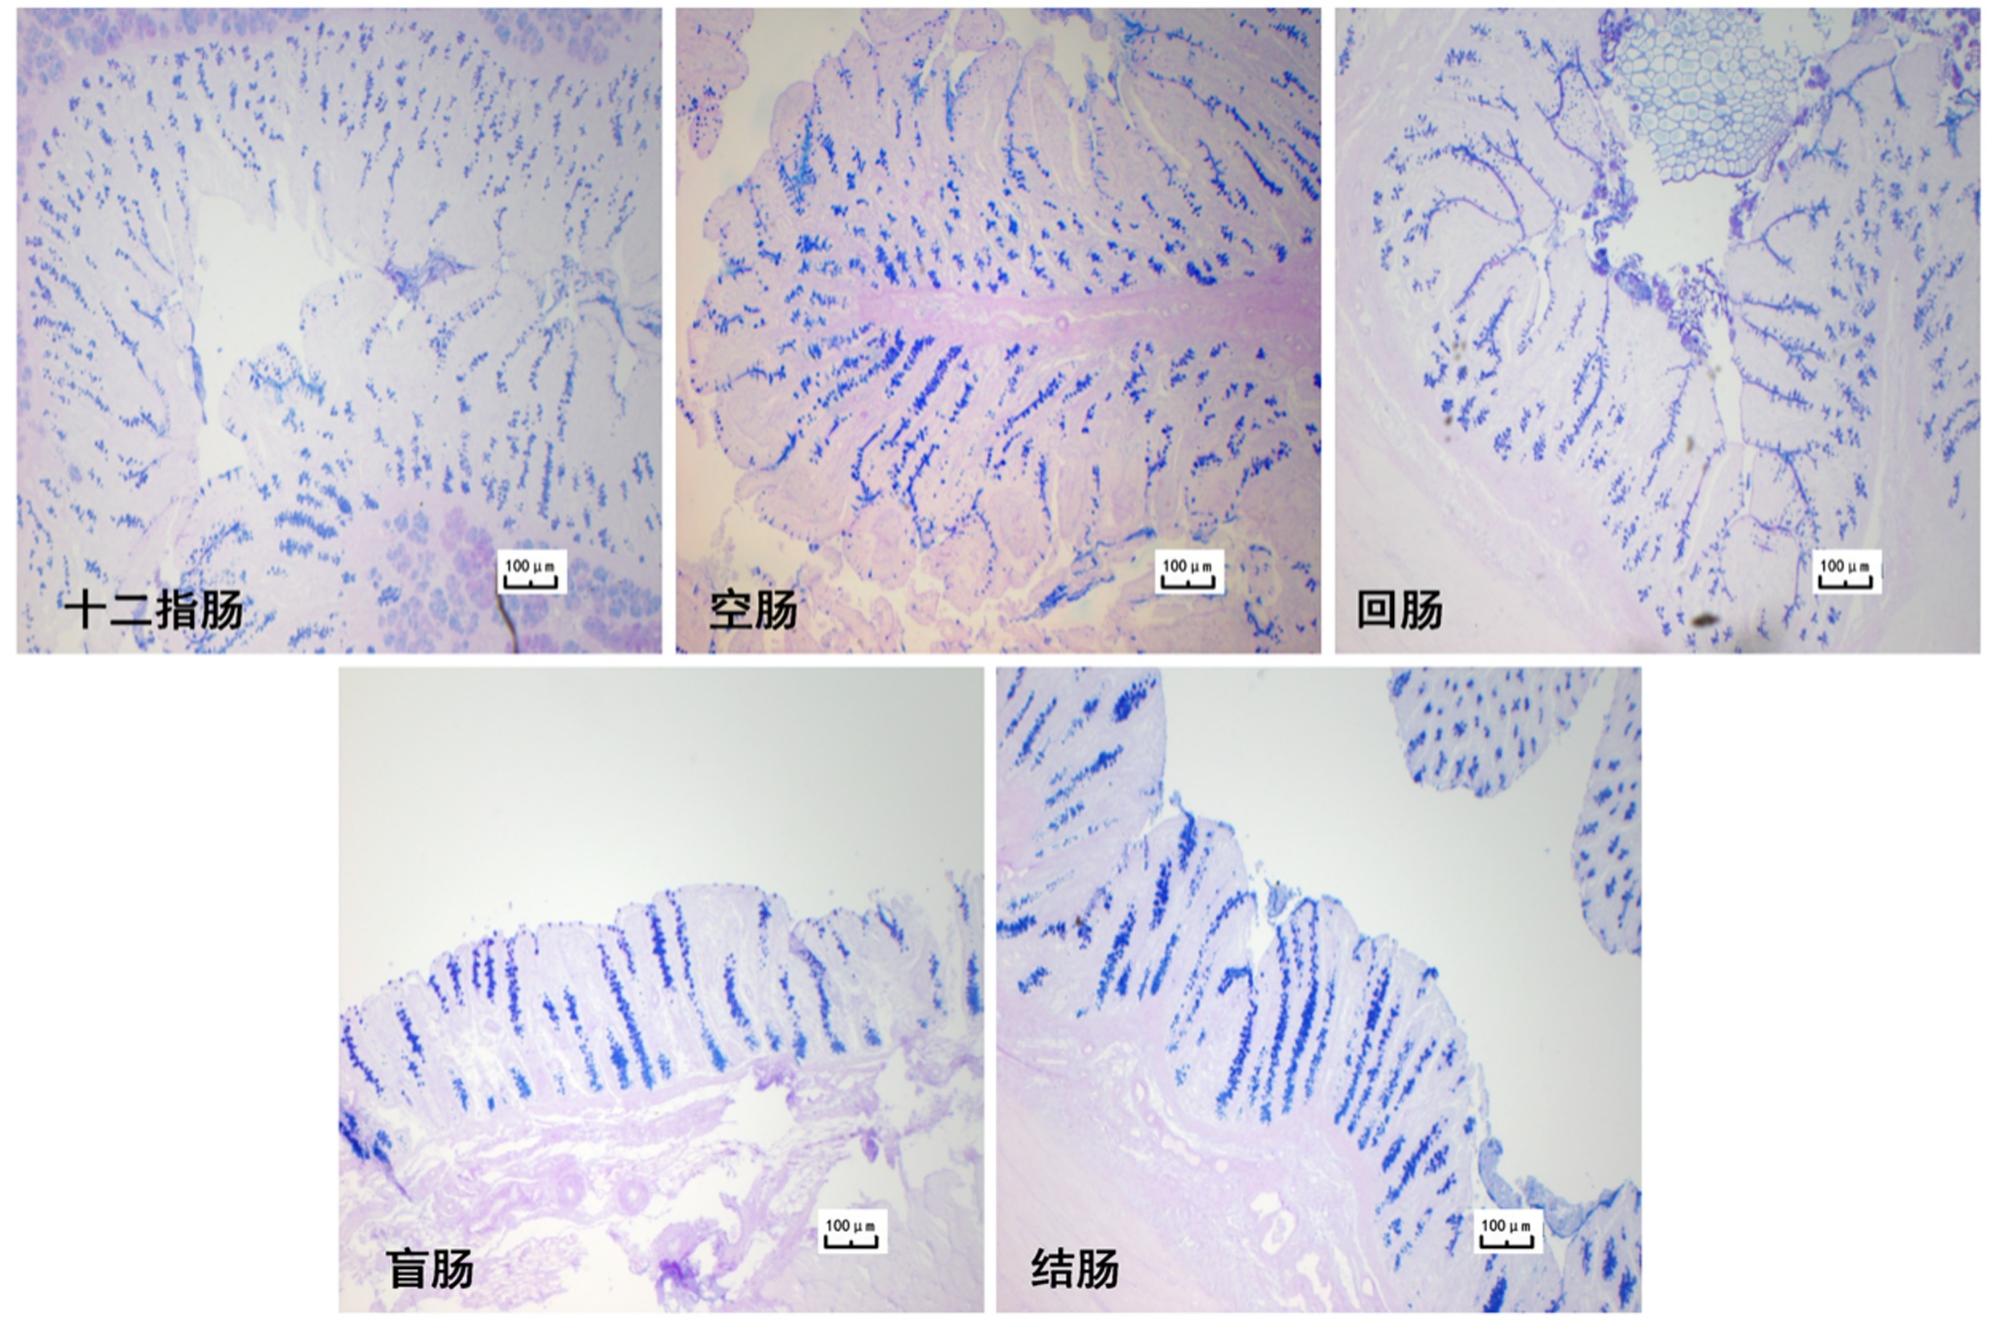
图2表3所示,空肠中杯状细胞数量显著高于十二指肠和回肠(P<0.05),与盲肠和结肠差异不显著(P>0.05)。
图2 仔猪不同肠段的杯状细胞

Fig.2 Goblet cells in different intestinal segments of piglets

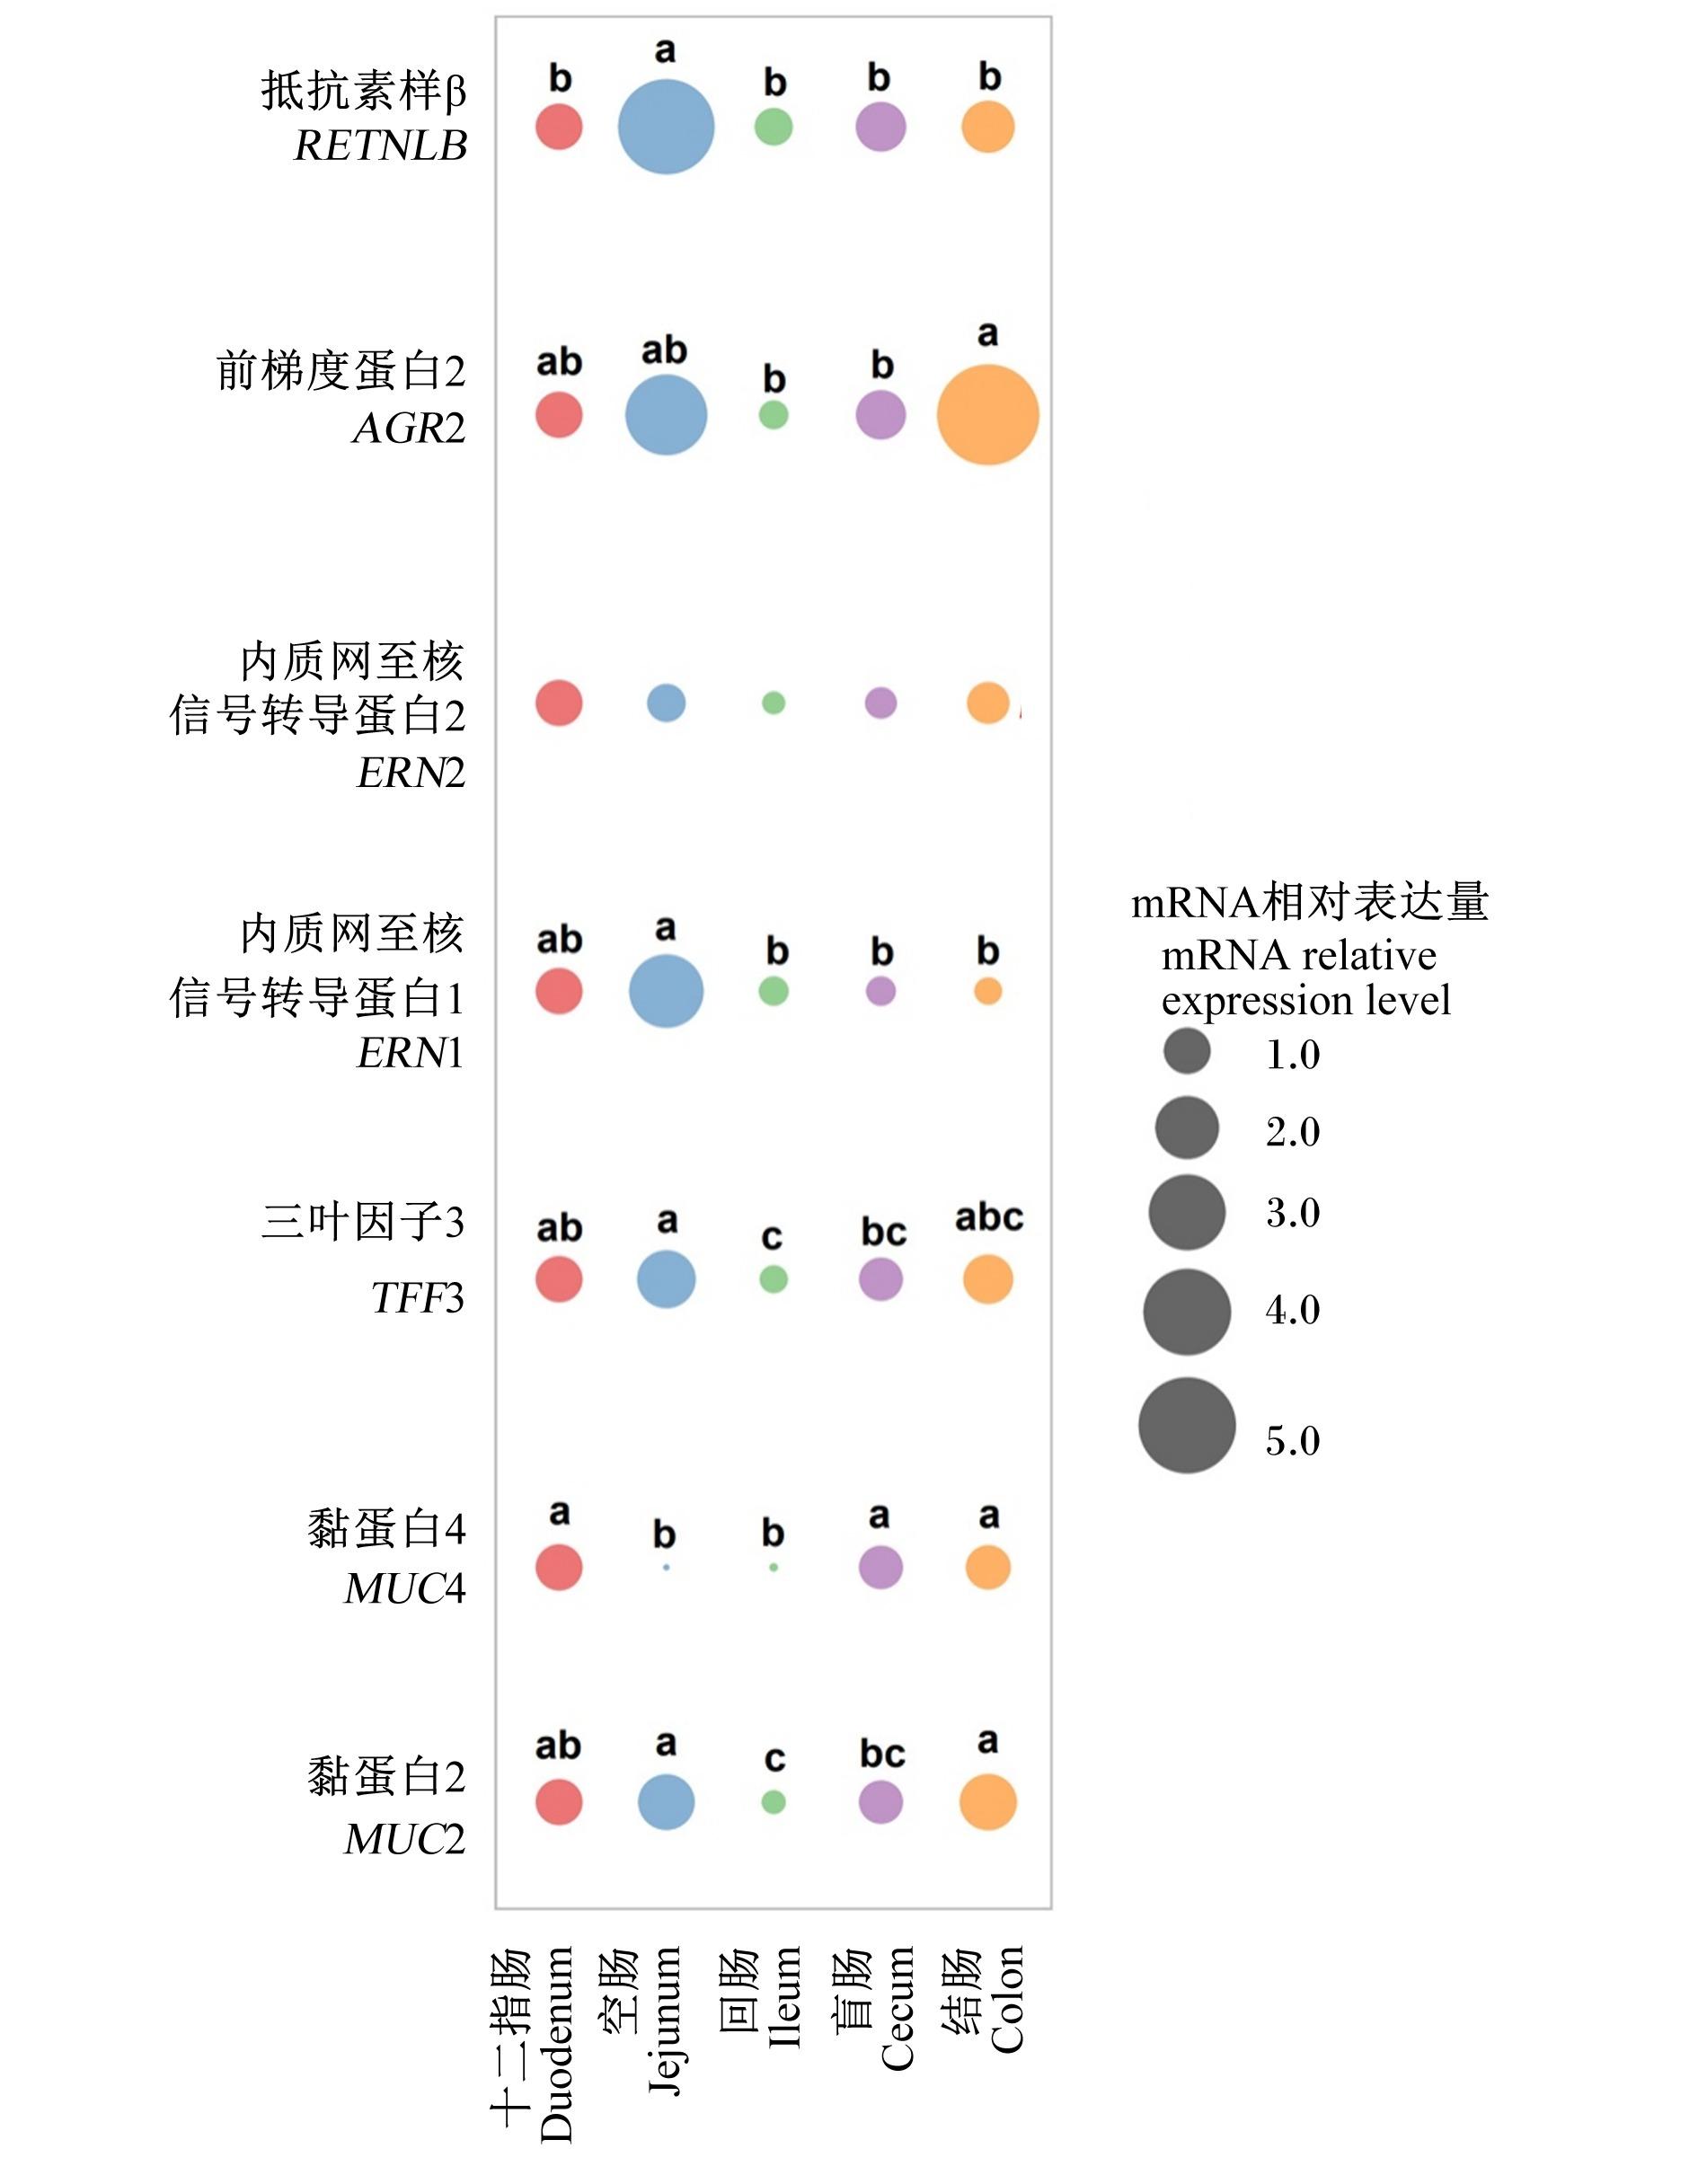
图3所示,抵抗素样β(RETNLB)基因在空肠中的mRNA相对表达量显著高于其他肠段(P<0.05);前梯度蛋白2(AGR2)基因在结肠中的mRNA相对表达量显著高于回肠和盲肠(P<0.05);内质网至核信号转导蛋白2(ERN2)基因在不同肠段间的mRNA相对表达量无显著差异(P>0.05);内质网至核信号转导蛋白1(ERN1)基因在空肠中的mRNA相对表达量显著高于回肠、盲肠和结肠(P<0.05);三叶因子3(TFF3)基因在回肠中的mRNA相对表达量显著低于十二指肠和空肠(P<0.05);黏蛋白4(MUC4)基因在空肠和回肠中的mRNA相对表达量显著低于十二指肠、盲肠和结肠(P<0.05);黏蛋白2(MUC2)基因在回肠中的mRNA相对表达量显著低于十二指肠、空肠和结肠(P<0.05)。
图3 仔猪不同肠段肠道黏蛋白相关基因表达

数据球标注无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。图4图5图6同。

Fig.3 Expression of intestinal mucin-related genes in different intestinal segments of piglets

Value spheres with no letter or the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as Fig.4, Fig.5 and Fig.6.

2.3 仔猪不同肠段黏蛋白O-糖Tn抗原相关基因表达比较

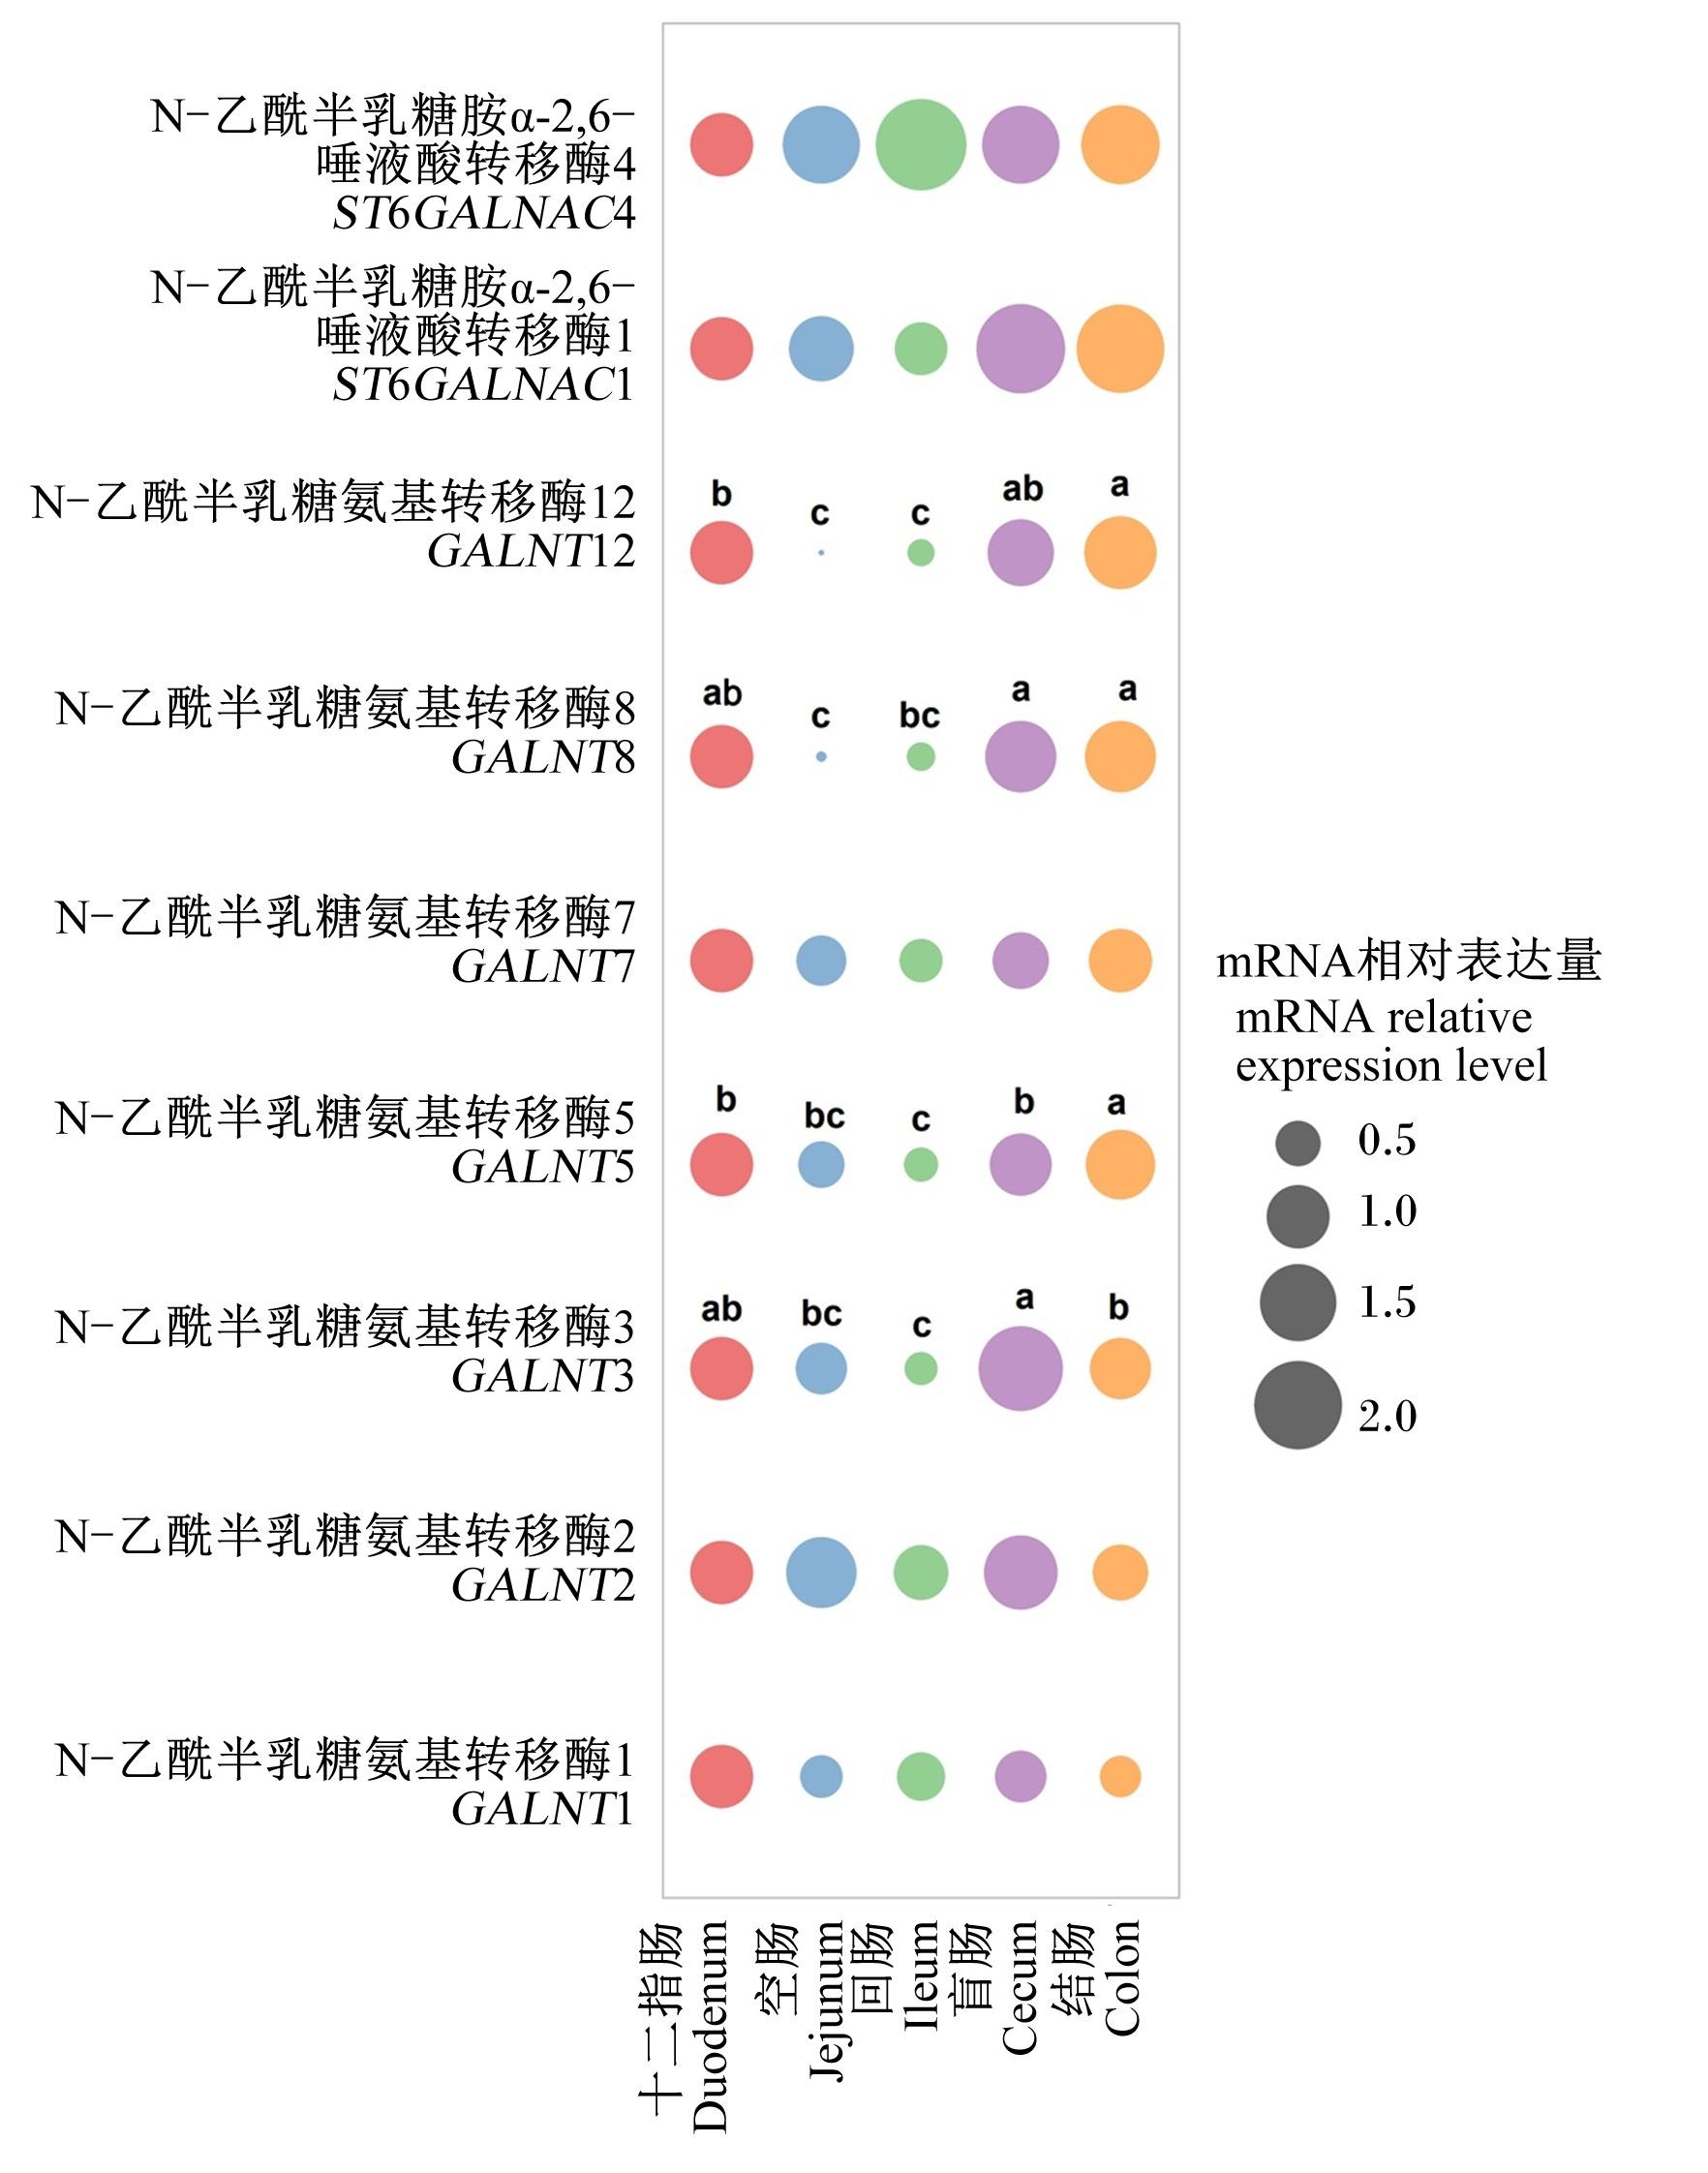
图4所示,N-乙酰半乳糖氨基转移酶12(GALNT12)基因在结肠和盲肠中的mRNA相对表达量显著高于其他肠段(P<0.05);N-乙酰半乳糖氨基转移酶8(GALNT8)基因在空肠中的mRNA相对表达量显著低于十二指肠(P<0.05),在盲肠、结肠中的mRNA相对表达量与十二指肠无显著差异(P>0.05);N-乙酰半乳糖氨基转移酶5(GALNT5)基因在回肠中的mRNA相对表达量显著低于十二指肠、盲肠和结肠(P<0.05);N-乙酰半乳糖氨基转移酶3(GALNT3)基因在回肠中的mRNA相对表达量显著低于十二指肠、盲肠和结肠(P<0.05);N-乙酰半乳糖胺α- 2,6-唾液酸转移酶4(ST6GALNAC4)、N-乙酰半乳糖胺α-2,6-唾液酸转移酶1(ST6GALNAC1)、N-乙酰半乳糖氨基转移酶7(GALNT7)、N-乙酰半乳糖氨基转移酶2(GALNT2)及N-乙酰半乳糖氨基转移酶1(GALNT1)基因在不同肠段间的mRNA相对表达量无显著差异(P>0.05)。
图4 仔猪不同肠段黏蛋白O-糖Tn抗原相关基因表达

Fig.4 Expression of mucin O-glycans Tn antigen-related genes in different intestinal segments of piglets

2.4 仔猪不同肠段黏蛋白O-糖核心结构修饰相关基因表达比较

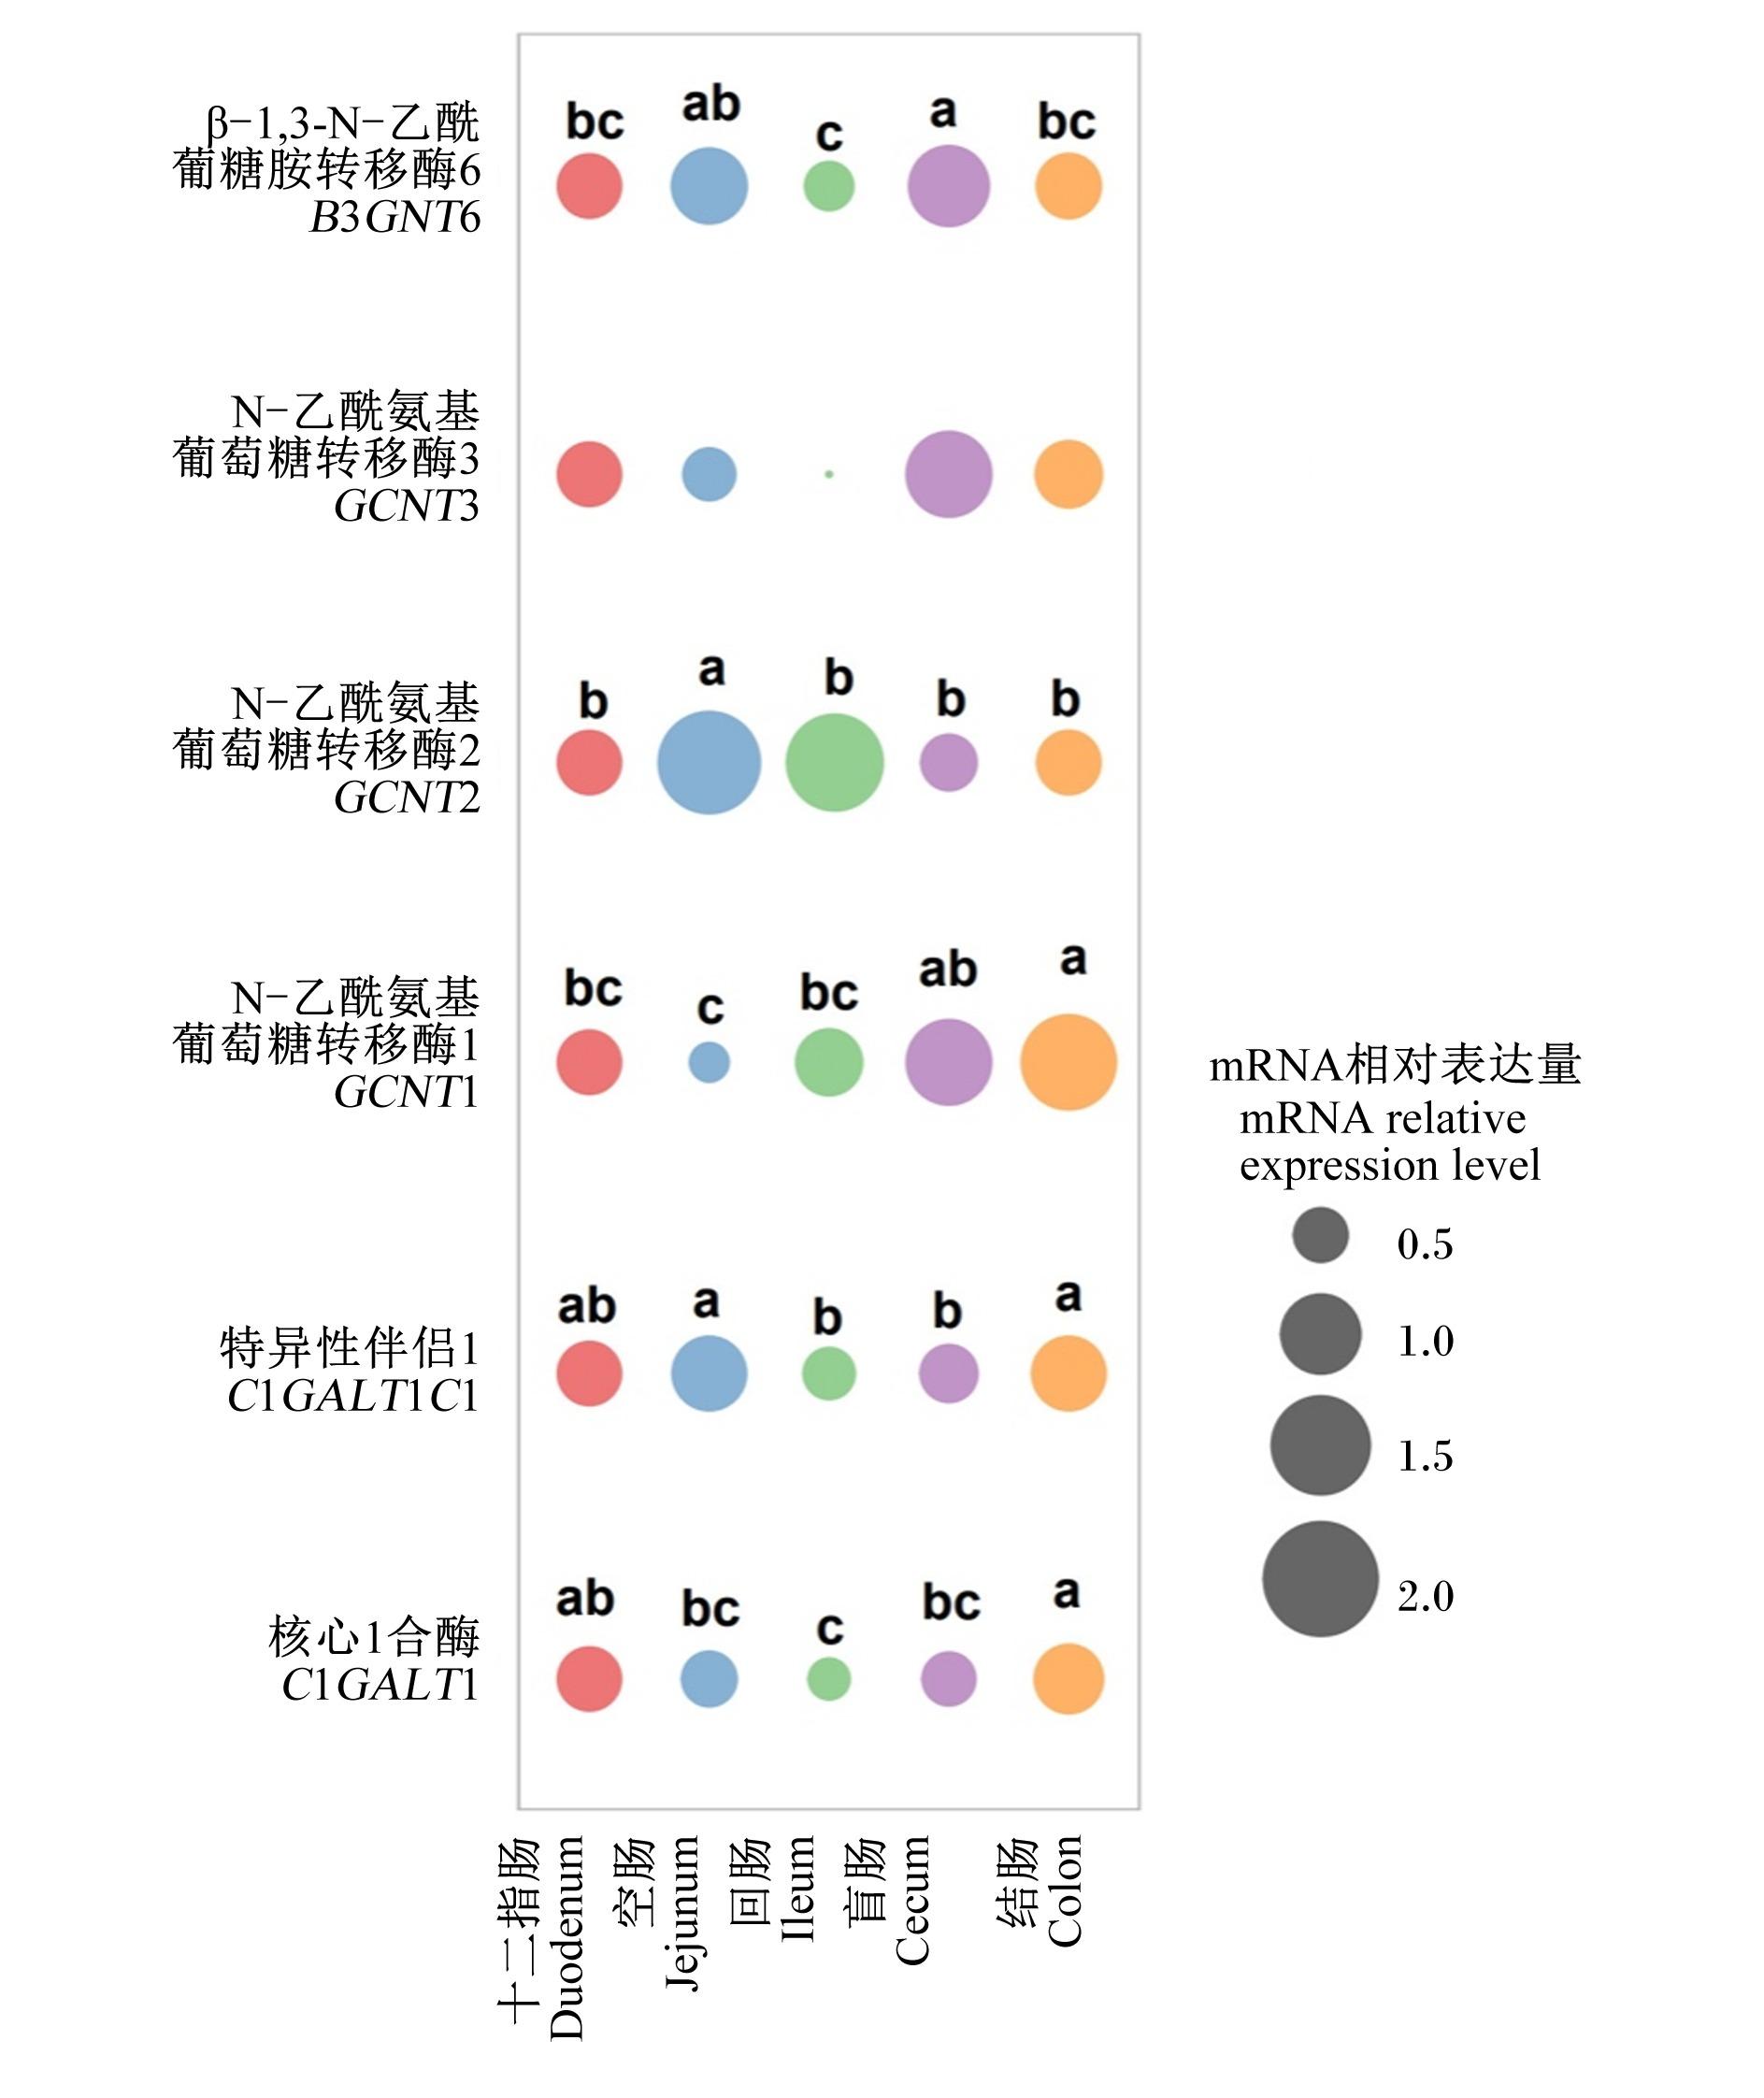
图5所示,β-1,3-N-乙酰葡糖胺转移酶6(B3GNT6)基因在盲肠中的mRNA相对表达显著高于十二指肠、回肠和结肠(P<0.05);N-乙酰氨基葡萄糖转移酶3(GCNT3)基因在不同肠段间的mRNA相对表达量无显著差异(P>0.05);N-乙酰氨基葡萄糖转移酶2(GCNT2)基因在空肠中的mRNA相对表达量显著高于其他肠段(P<0.05);N-乙酰氨基葡萄糖转移酶1(GCNT1)基因在结肠中的mRNA相对表达量显著高于十二指肠、空肠和回肠(P<0.05),且从空肠到后肠道,GCNT1的mRNA相对表达量呈现上升趋势;特异性伴侣1(C1GALT1C1)基因在空肠和结肠中的mRNA相对表达量显著高于回肠和盲肠(P<0.05);核心1合酶(C1GALT1)基因在结肠中的mRNA相对表达量显著高于空肠、回肠和盲肠(P<0.05),在回肠中的mRNA相对表达量显著低于十二指肠和结肠(P<0.05)。
图5 仔猪不同肠段黏蛋白O-糖核心结构修饰相关基因表达

Fig.5 Expression of genes related to core structural modification of mucin O-glycans in different intestinal segments of piglets

2.5 仔猪不同肠段黏蛋白O-糖末端结构修饰相关基因表达比较

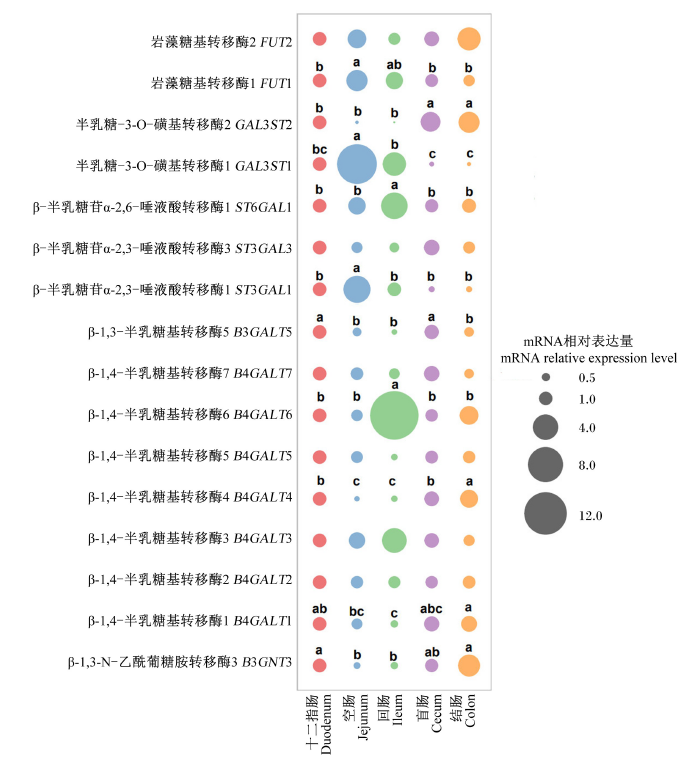
图6所示,岩藻糖基转移酶1(FUT1)基因在空肠中的mRNA相对表达量显著高于十二指肠、盲肠和结肠(P<0.05);半乳糖-3-O-磺基转移酶2(GAL3ST2)基因在十二指肠、空肠和回肠中的mRNA相对表达量显著低于盲肠和结肠(P<0.05);半乳糖-3-O-磺基转移酶1(GAL3ST1)基因在空肠中的mRNA相对表达量显著高于其他肠段(P<0.05);β-半乳糖苷α-2,6-唾液酸转移酶1(ST6GAL1)基因在回肠中的mRNA相对表达量显著高于其他肠段(P<0.05);β-半乳糖苷α-2,3-唾液酸转移酶1(ST3GAL1)基因在空肠中的mRNA相对表达量显著高于其他肠段(P<0.05);β-1,3-半乳糖基转移酶5(B3GALT5)基因在空肠、回肠、结肠中的mRNA相对表达量显著低于十二指肠和盲肠(P<0.05);β-1,4-半乳糖基转移酶6(B4GALT6)基因在回肠中的mRNA相对表达量显著高于其他肠段(P<0.05);β-1,4-半乳糖基转移酶4(B4GALT4)基因在结肠中的mRNA相对表达量显著高于其他肠段(P<0.05),在空肠、回肠中的mRNA相对表达量显著低于其他肠段(P<0.05);β-1,4-半乳糖基转移酶1(B4GALT1)基因在回肠中的mRNA相对表达量显著低于十二指肠和结肠(P<0.05);β-1,3-N-乙酰葡糖胺转移酶3(B3GNT3)基因在空肠、回肠中的mRNA相对表达量显著低于十二指肠和结肠(P<0.05);岩藻糖基转移酶2(FUT2)、β-半乳糖苷α-2,3-唾液酸转移酶3(ST3GAL3)、β-1,4-半乳糖基转移酶7(B4GALT7)、β-1,4-半乳糖基转移酶5(B4GALT5)、β-1,4-半乳糖基转移酶3(B4GALT3)、β-1,4-半乳糖基转移酶2(B4GALT2)基因在不同肠段间的mRNA相对表达量无显著差异(P>0.05)。
图6 仔猪不同肠段黏蛋白O-糖末端结构修饰相关基因表达

Fig.6 Expression of genes related to terminal structural modification of mucin O-glycans in different intestinal segments of piglets

2.6 相关性分析

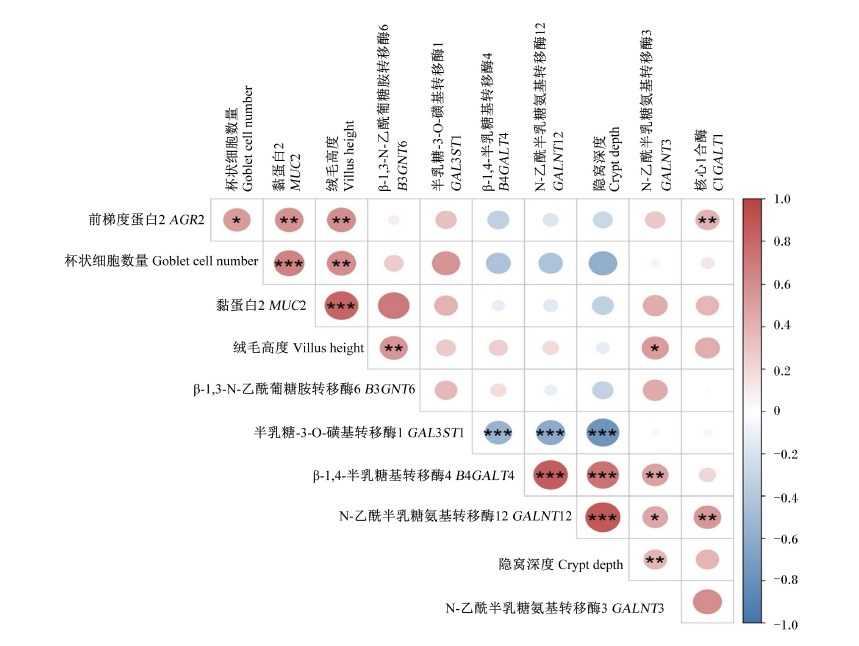
图7所示,肠道AGR2基因的mRNA相对表达量与杯状细胞数量、绒毛高度及MUC2和C1GALT1基因的mRNA相对表达量均呈显著正相关(P<0.05);杯状细胞数量与肠道MUC2基因的mRNA相对表达量和绒毛高度呈显著正相关(P<0.05);绒毛高度与肠道MUC2、B3GNT6、GALNT3基因的mRNA相对表达量呈显著正相关(P<0.05);肠道GAL3ST1基因的mRNA相对表达量与B4GALT4、GALNT12基因的mRNA相对表达量及隐窝深度呈显著负相关(P<0.05);肠道B4GALT4基因的mRNA相对表达量与GALNT12和GALNT3基因的mRNA相对表达量及隐窝深度呈显著正相关(P<0.05);肠道GALNT12基因的mRNA相对表达量与隐窝深度及GALNT3和C1GALT1基因的mRNA相对表达量呈显著正相关(P<0.05)。
图7 相关性分析

“*”:P<0.05;“**”:P<0.01;“***”:P<0.001。

Fig.7 Correlation analysis

2.7 PP对仔猪肠道黏蛋白糖基化修饰相关基因表达的影响

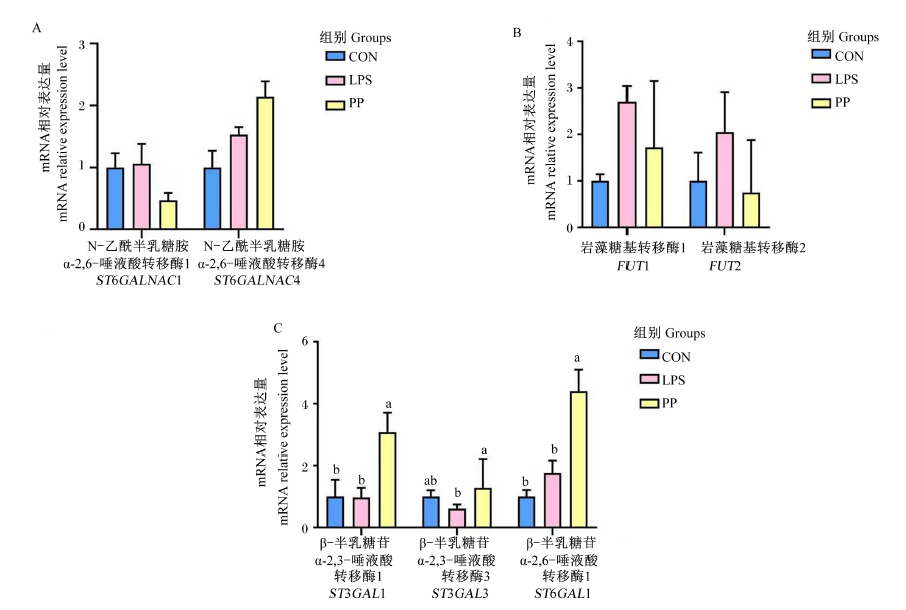
图8所示,PP组仔猪回肠中ST3GAL1和ST6GAL1基因的mRNA相对表达量显著高于CON组和LPS组(P<0.05);PP组回肠中ST3GAL3基因的mRNA相对表达量显著高于LPS组(P<0.05),与CON组差异不显著(P>0.05);各组间回肠中ST6GALNAC1、ST6GALNAC4、FUT1、FUT2基因的mRNA相对表达量无显著差异(P>0.05)。
图8 PP对仔猪肠道黏蛋白糖基化修饰相关基因表达的影响

数据柱标不同小写字母表示差异显著(P<0.05),无字母或相同小写字母表示差异不显著(P>0.05)。

Fig.8 Effects of PP on expression of genes related to intestinal mucin glycosylation modification of piglets

Value columns with different lowercase letters indicate significant difference (P<0.05), while with no letter or the same lowercase letters indicate no significant difference (P>0.05).

3 讨论

仔猪肠道不仅是营养物质消化、吸收的主要场所,更是抵御病原体入侵的第1道免疫屏障。由于各肠段在解剖结构、微生态环境及生理功能上存在显著差异,十二指肠至结肠承担着化学消化、养分吸收、水分再吸收及形成黏液屏障等任务[11],任何肠段的发育缺陷或功能紊乱都会引发断奶腹泻、生长受阻等健康问题。因此,从动物营养学角度系统解析不同肠段的形态结构、黏液分泌特性及其关键的糖基化修饰特征,对于深入理解肠道健康机制、开发靶向性营养干预策略具有至关重要的理论与实践意义,本研究揭示了仔猪从十二指肠至结肠的肠道形态、黏蛋白基因及黏蛋白O-糖相关糖基转移酶表达谱,包括糖链初始至延伸和末端结构修饰类型的分布规律。
绒毛高度和隐窝深度通常是评估仔猪肠道形态和功能的关键指标,绒毛高度与肠道消化吸收营养物质效率密切相关,隐窝深度反映细胞更新速率,绒毛高度/隐窝深度代表肠道屏障完整性和吸收效率[12]。本研究通过定量小肠绒毛高度进一步证实仔猪消化吸收营养物质主要集中于十二指肠和空肠;而回肠内富有淋巴结和派伊尔结,其主要行使免疫调控功能[13],是仔猪肠道至关重要的免疫活性部位。
LPS是革兰氏阴性菌细胞壁外膜的关键组分,也是仔猪断奶期常用的急性炎症与屏障损伤诱导模型,其可通过Toll样受体4(TLR4)-髓样分化因子88(MyD88)依赖途径激活核因子-κB(NF-κB)和丝裂原活化蛋白激酶(MAPK)信号通路,诱导肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)等促炎因子释放,并伴随肠道紧密连接蛋白下调与上皮通透性升高,最终导致黏膜屏障功能受损。已有研究在仔猪模型中证实,LPS刺激可显著降低闭锁小带蛋白-1(ZO-1)、闭合蛋白(Occludin)、封闭蛋白-1(Claudin-1)等屏障相关蛋白表达,损害肠道形态结构并加重炎症反应[14-16]。此外,LPS引发的炎症微环境还会干扰杯状细胞分泌程序与黏蛋白糖基化稳态,导致黏液层厚度、黏蛋白电荷特性及抗降解能力下降,从而削弱机体对病原体黏附与入侵的拦截能力[17-18]。PP是松树来源的多酚提取物,主要含原花青素等多酚成分,是一类具有抗氧化和抗炎等活性的植物功能物质。本研究发现,LPS组唾液酸化相关糖基化酶基因ST3GAL1、ST3GAL3及ST6GAL1的表达受抑制,PP处理可显著上调仔猪回肠中这些基因的表达,表明PP可通过调节唾液酸化相关糖基化酶的转录进而影响其糖基化修饰模式。已有研究表明,ST3GALST6GAL家族负责将唾液酸残基以α-2,3键或α-2,6键连接至糖蛋白或糖脂末端,是决定细胞表面糖被结构和功能的关键限速酶,其表达变化可显著影响黏膜屏障功能和免疫识别[19-20]。在肠道中,末端唾液酸化的黏蛋白有助于提高黏液层的稳定性和润滑性,减少蛋白酶降解,并通过调控病原菌黏附及共生菌利用宿主糖链的方式参与黏膜防御[21]
杯状细胞是肠道黏膜表面上一种重要的黏液分泌细胞,其分泌的MUC2以网状结构展开,与水和其他黏液成分如三叶因子、抗菌肽及分泌性免疫球蛋白A等混合,形成一层胶冻状的内黏液层,覆盖在肠道黏膜表面[22]。黏液层在小肠中为单层结构,而在胃和结肠中形成内外2层[23]。本研究通过定量肠道杯状细胞发现空肠中杯状细胞数量最多。空肠中黏液分泌能力的增强,不仅是为保护其巨大的吸收表面积免受机械损伤、消化酶侵蚀和病原体入侵,更为肠道微生物群提供了一个稳定和丰富的生态环境[24-25]。然而,不同肠段间的差异不仅体现在杯状细胞数量上,更可能体现在其分泌产物——黏蛋白的分子结构和功能特性上,尤其是其糖基化修饰的差异[26]。黏蛋白的O-糖基化是其发挥生物学功能的核心,这些复杂的糖链结构决定了黏蛋白的理化性质、构象完整性,并直接介导其与肠道微生物的互作[27]。因此,结合本研究中相关性分析的结果推测,空肠杯状细胞数量的增加,伴随的是MUC2黏蛋白糖基化模式的区域性特化。这种特化是由负责糖链合成的糖基转移酶的差异性表达所驱动的。已有研究表明,猪不同肠段间存在广泛的基因表达差异,这些差异涉及代谢、免疫和信号传导等多个方面[28],其中就可能包括了各类糖基转移酶基因。例如,岩藻糖基转移酶和唾液酸转移酶等基因的表达量和活性,直接决定了黏蛋白糖链末端的修饰类型,即岩藻糖基化和唾液酸化的程度。
从养分代谢与生产性能角度看,后肠(盲肠、结肠)糖链延伸与末端结构修饰相关酶的差异表达,可能影响微生物发酵底物利用与短链脂肪酸产生。丁酸等代谢产物既是结肠上皮重要能量来源,也可促进紧密连接与上皮修复,进而提高屏障完整性和能量转化效率[29]。结肠中GALNT12、GCNT1及B4GALT4显著高表达,构建了复杂的O-糖链支架,这为厚壁菌门等产丁酸菌提供了特异性的碳源依附位点和代谢底物,在生产实践中,改善肠道形态和黏膜免疫可提升仔猪日增重与饲料效率[30]。本研究中,空肠以较大的绒毛高度和杯状细胞数量支撑消化吸收,回肠以唾液酸化增强免疫稳态,结肠以核心延伸和末端修饰适应菌群共生与发酵代谢,三者共同构成“结构-代谢-性能”连续链条。总体而言,肠道分区糖基化差异不仅受MUC2、MUC4等核心黏蛋白基因影响,更受N-乙酰半乳糖氨基转移酶、N-乙酰氨基葡萄糖转移、唾液酸转移酶及岩藻糖基转移酶的精细调控;该调控通过改变黏液层物理性质、宿主-菌群互作及免疫代谢平衡,参与区域特异性屏障功能建立。
十二指肠作为营养物质吸收的主要部位,其高表达的GALNT5和B3GALT5可能通过调控黏蛋白O-糖基化,参与上皮细胞分化与屏障构建,这与N-糖基化途径通过Wnt信号通路调控绒毛形态的机制有关[31]。空肠中RETNLBGCNT2的高表达及MUC4的低表达,代表该肠段黏蛋白可能以特定糖链结构优化黏液层物理特性,而B4GALT1与B3GNT3的下调进一步表明N-乙酰乳糖胺合成减弱,可能影响菌群定植模式[32]。回肠中ST6GAL1、B4GALT6的高表达与MUC2、C1GALT1的低表达形成对比,反映该部位通过内质网应激响应蛋白调控黏蛋白加工,而唾液酸化修饰的增加可能增强黏液抗降解能力[33]。结肠中GALNT12、GCNT1及B4GALT4的高表达,驱动黏蛋白O-糖核心及末端结构修饰的改变,这种修饰特征与厚壁菌门富集相关,可能通过GALNT12等酶介导的O-糖基化维持菌群共生,而结肠中AGR2的高表达进一步支持结肠黏液层对菌群稳态的调控作用[32]。值得注意的是,盲肠作为中间部位,其黏蛋白修饰基因的表达介于小肠与结肠之间,MUC2等的表达与回肠相似,但GALNT3的低表达可能削弱黏蛋白糖链延伸,增加炎症易感性[33]。肠道分区糖基化差异不仅由黏蛋白核心基因(MUC2、MUC4等)表达决定,更受GALNT、GCNT等糖基转移酶的精细调控,这些修饰通过影响黏液物理性质、菌群互作及信号通路,参与区域特异性屏障功能的建立。未来也需结合菌群互作与宿主免疫方面的研究,深入解析糖基化修饰对肠道健康的调控机制。

4 结论

本研究揭示了仔猪肠道黏蛋白糖基化修饰存在显著的肠段特异性:空肠以核心结构修饰为主,有助于形成保护性黏液屏障,从而保障营养物质的吸收;回肠侧重唾液酸化修饰,可增强黏液稳定性以适应免疫调节需求,且饲粮中添加PP可增强仔猪回肠唾液酸糖基化修饰;结肠则富集核心及末端结构修饰,为微生物稳定共生提供生态位。
[1]
李晓波. 小肠消化吸收功能评价[J]. 诊断学理论与实践, 2008, 7(1):114-116.

LI X B. Evaluation of the digestive and absorptive functions of the small intestine[J]. Journal of Diagnostics Concepts & Practice, 2008, 7(1):114-116. (in Chinese)

[2]
RIEGER J. The intestinal mucosal network in the pig:a histological view on nutrition-microbiota-pathogen-host-interactions[D]. Ph.D.Thesis.Berlin:Freie Universität Berlin, 2016.

[3]
车思艳, 王妮, 吴苗苗. 猪的肠道黏液屏障[J]. 动物营养学报, 2024, 36(2):681-690.

DOI

CHE S Y, WANG N, WU M M. Intestinal mucus barrier of pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):681-690. (in Chinese)

DOI

[4]
PLUSKE J R, TURPIN D L, KIM J C. Gastrointestinal tract (gut) health in the young pig[J]. Animal Nutrition, 2018, 4(2):187-196.

DOI PMID

[5]
FEKETE E, BURET A G. The role of mucin O-glycans in microbiota dysbiosis,intestinal homeostasis,and host-pathogen interactions[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2023, 324(6):G452-G465.

[6]
KEARNS F L, ROSENFELD M A, AMARO R E. Breaking down the bottlebrush:atomically detailed structural dynamics of mucins[J]. Journal of Chemical Information and Modeling, 2024, 64(20):7949-7965.

DOI

[7]
ABO H, KAWASHIMA H. Significance of sulfated glycans on mucins in the gut[J]. Trends in Glycoscience and Glycotechnology, 2023, 35(207):J73-J77.

[8]
BERGSTROM K S B, XIA L J. Mucin-type O-glycans and their roles in intestinal homeostasis[J]. Glycobiology, 2013, 23(9):1026-1037.

DOI PMID

[9]
VANCAMELBEKE M, VERMEIRE S. The intestinal barrier:a fundamental role in health and disease[J]. Expert Review of Gastroenterology & Hepatology, 2017, 11(9):821-834.

[10]
WEISS G A, HENNET T. Mechanisms and consequences of intestinal dysbiosis[J]. Cellular and Molecular Life Sciences, 2017, 74(16):2959-2977.

DOI PMID

[11]
SENSOY I. A review on the food digestion in the digestive tract and the used in vitro models[J]. Current Research in Food Science, 2021,4:308-319.

[12]
HEO J M, OPAPEJU F O, PLUSKE J R, et al. Gastrointestinal health and function in weaned pigs:a review of feeding strategies to control post-weaning diarrhoea without using in-feed antimicrobial compounds[J]. Journal of Animal Physiology and Animal Nutrition, 2013, 97(2):207-237.

DOI

[13]
PARK J I, CHO S W, KANG J H, et al. Intestinal peyer’s patches:structure,function,and in vitro modeling[J]. Tissue Engineering and Regenerative Medicine, 2023, 20(3):341-353.

DOI

[14]
LU Y C, YEH W C, OHASHI P S. LPS/TLR4 signal transduction pathway[J]. Cytokine, 2008, 42(2):145-151.

DOI

[15]
GUO S H, AL-SADI R, SAID H M, et al. Lipopolysaccharide causes an increase in intestinal tight junction permeability in vitro and in vivo by inducing enterocyte membrane expression and localization of TLR-4 and CD14[J]. The American Journal of Pathology, 2013, 182(2):375-387.

DOI

[16]
CAO S T, WANG C C, WU H, et al. Weaning disrupts intestinal antioxidant status,impairs intestinal barrier and mitochondrial function,and triggers mitophagy in piglets[J]. Journal of Animal Science, 2018, 96(3):1073-1083.

DOI

[17]
JOHANSSON M E V, HANSSON G C. Immunological aspects of intestinal mucus and mucins[J]. Nature Reviews Immunology, 2016, 16(10):639-649.

DOI PMID

[18]
PELASEYED T, BERGSTRÖM J H, GUSTAFSSON J K, et al. The mucus and mucins of the goblet cells and enterocytes provide the first defense line of the gastrointestinal tract and interact with the immune system[J]. Immunological Reviews, 2014, 260(1):8-20.

DOI PMID

[19]
HARDUIN-LEPERS A, VALLEJO-RUIZ V, KRZEWINSKI-RECCHI M A, et al. The human sialyltransferase family[J]. Biochimie, 2001, 83(8):727-737.

DOI

[20]
VARKI A, GAGNEUX P. Multifarious roles of sialic acids in immunity[J]. Annals of the New York Academy of Sciences, 2012, 1253(1):16-36.

DOI

[21]
CORFIELD A P. Mucins:a biologically relevant glycan barrier in mucosal protection[J]. Biochimica et Biophysica Acta, 2015, 1850(1):236-252.

[22]
ERMUND A, SCHÜTTE A, JOHANSSON M E V, et al. Studies of mucus in mouse stomach,small intestine,and colon.Ⅰ.Gastrointestinal mucus layers have different properties depending on location as well as over the Peyer’s patches[J]. American Journal of Physiology-Gastrointestinal and Liver Physiology, 2013, 305(5):G341-G347.

[23]
JOHANSSON M E V, SJÖVALL H, HANSSON G C. The gastrointestinal mucus system in health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2013, 10(6):352-361.

[24]
GRONDIN J A, KWON Y H, FAR P M, et al. Mucins in intestinal mucosal defense and inflammation:learning from clinical and experimental studies[J]. Frontiers in Immunology, 2020,11:2054.

[25]
DUANGNUMSAWANG Y, ZENTEK J, GOODARZI BOROOJENI F. Development and functional properties of intestinal mucus layer in poultry[J]. Frontiers in Immunology, 2021,12:745849.

[26]
XIA B, WU W D, ZHANG L, et al. Gut microbiota mediates the effects of inulin on enhancing sulfomucin production and mucosal barrier function in a pig model[J]. Food & Function, 2021, 12(21):10967-10982.

[27]
BERGSTROM K, XIA L J. The barrier and beyond:roles of intestinal mucus and mucin-type O-glycosylation in resistance and tolerance defense strategies guiding host-microbe symbiosis[J]. Gut Microbes, 2022, 14(1):2052699.

DOI

[28]
MACH N, BERRI M, ESQUERRÉ D, et al. Extensive expression differences along porcine small intestine evidenced by transcriptome sequencing[J]. PLoS One, 2014, 9(2):e88515.

DOI

[29]
GUILLOTEAU P, MARTIN L, EECKHAUT V, et al. From the gut to the peripheral tissues:the multiple effects of butyrate[J]. Nutrition Research Reviews, 2010, 23(2):366-384.

DOI

[30]
GRESSE R, CHAUCHEYRAS-DURAND F, FLEURY M A, et al. Gut microbiota dysbiosis in postweaning piglets:understanding the keys to health[J]. Trends in Microbiology, 2017, 25(10):851-873.

DOI

[31]
WANG Q Q, GUO M M, WANG Y C, et al. The relationship of N-glycosylation and porcine duodenal morphology and function[J]. Journal of Animal Science, 2025,103:skaf087.

[32]
CHENG H, LI H, ZHAO Y J, et al. Transcriptome analysis reveals modulations in glycosylation profiles of the mucosal barrier and their potential interaction with gut microbiota in weaned piglets[J]. Animal Nutrition, 2025,20:226-238.

[33]
GUTIERREZ A, TINGLER A, ENGEVIK A, et al. Distinct mucin profiles correlate with inflammation in ulcerative colitis[J]. Inflammatory Bowel Diseases, 2025, 31(S1):S45-S46.

Outlines

/