RESEARCH PAPER

Effects of Dietary Rumen-Protected Glucose Supplementation on Slaughter Performance, Meat Quality, Muscle Glycolysis and Metabolites of Yaks under Transportation Stress

  • WANG Xiaolin , 1 ,
  • ZHANG Li , 2, *, * ,
  • SHAO Chong 1 ,
  • TANG Lixing 1 ,
  • ZHAO Yanfei 1 ,
  • XU Zhiyong 1 ,
  • HU Rui 1 ,
  • PENG Quanhui 1 ,
  • XIAO Jianxin 1 ,
  • WANG Lizhi 1 ,
  • WANG Zhisheng 1 ,
  • XUE Bai , 1, ** ,
  • ZHOU Jia , 2, **
Expand
  • 1 Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Chongqing Academy of Animal Sciences, Chongqing 402460, China
** XUE Bai, professor, E-mail: ;
ZHOU Jia, assistant professor, E-mail:

* Contributed equally

Received date: 2025-10-04

  Online published: 2026-07-13

Abstract

This experiment aimed to investigate the effects of dietary rumen-protected glucose (RPG) supplementation on slaughter performance, meat quality, muscle glycolysis and metabolites of yaks under transportation stress. A total of 18 healthy male yaks aged 2 to 3 years with similar body weight [(166.5±9.7) kg] were randomly divided into 2 groups with 9 replicates per group and 1 yak per replicate. Yaks in the conventional transport group (CT group) were fed a basal diet, while those in the RPG group were fed the basal diet supplemented with 1% RPG for 7 days. After the feeding period, all yaks were transported by road for 600 km (approximately 8 h) and slaughtered uniformly. The results showed that after transportation, compared with the CT group: 1) the RPG group had a significantly lower plasma malondialdehyde concentration (P<0.05) and a tendency for lower plasma cortisol concentration (P=0.073), but no significant changes in slaughter performance were observed (P>0.05); 2) the RPG group showed significantly lower pH45 min and pH24 h as well as lactic acid concentration in longissimus dorsi (P<0.05), and significantly higher activities of pyruvate kinase, hexokinase and fructose-6-phosphate kinase, as well as higher concentrations of glycogen and glucose-6-phosphate, and higher glycolytic potential in longissimus dorsi (P<0.05); 3) the RPG group had a significantly higher intramuscular fat content in longissimus dorsi (P<0.05), and optimized the fatty acid composition of the longissimus dorsi by significantly decreasing C18∶1n9t content and significantly increasing C18∶3n3 content (P<0.05); 4) in the RPG group, 24 metabolites such as phosphatidylcholine [15∶0/18∶1(11Z)] and phosphatidylcholine [18∶1(9Z)/15∶0] were significantly up-regulated (P<0.05), while 18 metabolites including 3-hydroxytridecanoyl carnitine were significantly down-regulated (P<0.05). The differential metabolites were mainly enriched in pathways such as reverse endocannabinoid signaling and linoleic acid metabolism. In conclusion, dietary supplementation with 1% RPG before transport can effectively alleviate transportation stress in yaks, regulate key indices of muscle glycolysis, optimize muscle fatty acid composition and lipid metabolism characteristics, thereby improving yak meat quality and nutritional properties.

Cite this article

WANG Xiaolin , ZHANG Li , SHAO Chong , TANG Lixing , ZHAO Yanfei , XU Zhiyong , HU Rui , PENG Quanhui , XIAO Jianxin , WANG Lizhi , WANG Zhisheng , XUE Bai , ZHOU Jia . Effects of Dietary Rumen-Protected Glucose Supplementation on Slaughter Performance, Meat Quality, Muscle Glycolysis and Metabolites of Yaks under Transportation Stress[J]. Chinese Journal of Animal Nutrition, 2026 , 38(7) : 5184 -5196 . DOI: 10.12418/CJAN2026.416

牦牛是青藏高原特有的反刍动物,牦牛肉因营养价值高、风味独特而备受消费者青睐。然而,牦牛养殖模式分散,加之草地资源的季节性变化,迫使其在不同地点出生、育肥和屠宰,这意味着牦牛一生中可能经历多次公路运输,进而对机体健康、生产性能及肉品质产生不利影响[1-2]。Kadim等[3]报道,运输应激可通过改变山羊的生理反应和肌肉代谢,进而影响肉品质。Li等[4]也发现,屠宰前运输会损害羔羊肉品质,其原因可能与运输过程中肌糖原的过度消耗及屠宰时糖酵解潜力(glycolytic potential,GP)降低有关。葡萄糖(glucose,GLU)是动物体内主要的能量来源,能够直接、快速地为机体生命活动提供能量。过瘤胃葡萄糖(rumen-protected glucose,RPG)可减少GLU在瘤胃中的损耗,使其进入小肠后释放并被高效利用,从而快速提升机体血糖水平,缓解能量负平衡[5]。在运输应激导致机体能量需求激增的情况下,RPG可能具有潜在的应用价值。施建川[6]研究表明,饲粮添加RPG可提高杜蒙萨羊的养分消化率,改善其肌肉营养品质、脂肪酸分布及储存稳定性。然而,目前关于饲粮添加RPG对公路运输后牦牛肉品质的影响鲜有报道。因此,本研究旨在探究饲粮添加RPG对运输应激牦牛屠宰性能、肉品质、肌肉糖酵解及代谢物的影响,以期为缓解运输应激对牦牛肉质的负面影响提供可行的营养性策略。

1 材料与方法

1.1 试验材料

本试验所用RPG为白色颗粒状,活性成分含量>50%,瘤胃保护率>85%,小肠释放率>90%。

1.2 试验设计与饲养管理

动物试验方案经四川农业大学动物福利委员会审核批准(批准编号:20210628)。饲养试验于四川农业大学雅安教学科研基地开展,所有试验动物均由专人规范饲养。选取18头2~3岁、体重[(166.5±9.7) kg]相近的健康公牦牛,随机分为2组,每组9个重复,每重复1头。常规运输组(CT组)饲喂基础饲粮,RPG组饲喂在基础饲粮中添加1% RPG的饲粮,持续饲喂7 d。基础饲粮参照NASEM(2016)[7]配制,其组成及营养水平见表1。所有牦牛单栏栓系饲养,饲粮以全混合日粮(TMR)形式提供,每天08:00和18:00各饲喂1次,保证5%~10%的剩料量,自由饮水。饲喂期结束后,2组牦牛统一进行公路运输。运输前禁食3 h,随后将牦牛装载至底部铺沙、顶部封闭的半挂运输车上,于高速公路行驶600 km,运输时长约8 h,途中禁食禁水,最终转运至雅安当地商业化屠宰场。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 37.90
豆粕Soybean meal 14.25
稻草Rice straw 24.72
玉米秸秆青贮Corn stover silage 15.30
麦麸Wheat bran 5.53
食盐NaCl 0.20
碳酸氢钠NaHCO3 0.60
碳酸钙CaCO3 0.50
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
维持净能NEm/(MJ/kg) 6.85
增重净能NEg/(MJ/kg) 4.10
粗蛋白质CP 13.12
中性洗涤纤维NDF 35.47
酸性洗涤纤维ADF 23.21
钙Ca 0.74
磷P 0.42

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 4 500 IU,VD3 900 IU,VE 150 IU,Fe (as ferrous sulfate) 100 mg,Zn (as zinc sulfate) 75 mg,Mn (as manganese sulfate) 55 mg,Cu (as copper sulfate) 10 mg,I (as potassium iodide) 0.6 mg,Se (as sodium selenite) 0.3 mg,Co (as cobalt chloride) 0.15 mg。

2)维持净能和增重净能为计算值[7],其余为实测值。NEm and NEg were calculated values[7], while the others were measured values.

1.3 样品采集

分别于运输前和运输后采集牦牛颈静脉血,置于肝素钠抗凝采血管中,4 ℃、3 000×g离心15 min获得血浆样品,置于-20 ℃保存,用于后续氧化应激指标测定。采用电击致晕、放血方式将牦牛屠宰后,进行剥皮处理并去除内脏,采集背最长肌样品。其中,一部分样品置于4 ℃保存,用于肉品质测定;一部分样品置于-20 ℃保存,用于常规养分含量测定;剩余样品置于-80 ℃保存,用于后续抗氧化指标、糖酵解指标、脂肪酸组成及非靶向代谢组学分析测定。

1.4 指标测定

1.4.1 饲粮养分含量测定

饲粮中粗蛋白质(CP)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、钙(Ca)和磷(P)含量分别参照GB/T 6432—2018、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018和GB/T 6437—2018的方法进行测定。

1.4.2 血浆氧化应激指标测定

血浆丙二醛(malondialdehyde,MDA)和皮质醇(cortisol,COR)浓度使用江苏酶免实业有限公司提供的试剂盒进行测定。

1.4.3 屠宰性能测定

参照《肉牛生产性能测定技术规范》(GB/T 43838—2024)测定牦牛宰前活重、胴体重、骨重、净肉重,并计算屠宰率、净肉率和肉骨比。

1.4.4 背最长肌肉品质测定

屠宰后取背最长肌样品,使用CR 400色差仪(Konica Minolta,日本)测定肉色亮度(L*)、红度(a*)和黄度(b*)值;使用便携式pH计(MEAT-6型,北京天翔飞域科技有限公司)测定屠宰45 min和24 h后背最长肌的pH,分别记为pH45 min和pH24 h。肉色和pH均以同一块肉样不同位置重复测定3次的平均值作为最终结果。背最长肌滴水损失和蒸煮损失参照Zhang等[8]描述的方法进行测定;背最长肌水分、CP、肌内脂肪和粗灰分(Ash)含量分别参照GB 5009.3—2016、GB 5009.5—2016、GB 5009.6—2016和GB 5009.4—2016的方法进行测定。

1.4.5 背最长肌抗氧化指标测定

背最长肌超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)、过氧化氢酶(catalase,CAT)活性和总抗氧化能力(total antioxidant capacity,T-AOC)及MDA浓度使用南京建成生物工程研究所提供的试剂盒进行测定。

1.4.6 背最长肌糖酵解指标测定

背最长肌丙酮酸激酶(pyruvate kinase,PK)、己糖激酶(hexokinase,HK)、果糖-6-磷酸激酶(6-phosphofructokinase,PFK)活性及糖原(glycogen,GLY)、GLU、葡萄糖-6-磷酸(glucose-6-phosphate,G6P)、乳酸(lactic acid,LA)浓度使用江苏艾迪生生物科技有限公司提供的试剂盒进行测定。通过Monin等[9]报道的公式计算GP[GP=2×(GLY+GLU+G6P)+LA]。

1.4.7 背最长肌脂肪酸组成分析

参照Yao等[10]描述的方法,使用GC-2010 Plus气相色谱仪(Shimadzu Corporation,美国)对背最长肌脂肪酸组分进行相对定量分析。

1.4.8 背最长肌非靶向代谢组学分析

从每组中选取6头体重接近组内平均值的牦牛,取其背最长肌样品进行代谢组学分析。样品前处理参照Liu等[11]描述的方法进行:取100 mg肌肉样品与1 000 μL组织提取液混匀,在高通量组织研磨仪(Fastprep24型,MP Biomedicals,美国)中充分研磨;随后在4 ℃下超声提取30 min,-20 ℃静置30 min,再以13 000×g离心15 min;收集上清液,使用2-氯-L-苯丙氨酸溶液彻底溶解,用于液相色谱-质谱联用(LC-MS)检测。采用UHPLC-Q Exactive超高效液相色谱串联傅里叶变换质谱系统(Thermo Fisher Scientific,美国)进行代谢组学分析,质谱检测分别在正、负离子模式下进行,采用加热电喷雾离子化扫描。质谱参数:正离子模式下喷雾电压3.8 kV,负离子模式下喷雾电压3.0 kV;鞘气流量40 arb,辅助气流量10 arb,辅助气温度350 ℃,扫描范围70~1 050 m/z。原始数据经ProteoWizard软件转换为mzXML格式,利用XCMS软件进行峰对齐、保留时间校正与峰面积提取;结合本地自建数据库及Massbank等公共数据库完成代谢物注释鉴定。采用多元统计分析[主成分分析(PCA)、正交偏最小二乘判别分析(OPLS-DA)]构建模型,设定变量投影重要度(VIP)>2且P<0.05为差异代谢物的筛选标准。

1.5 数据统计分析

采用SPSS 21.0软件对血浆氧化应激、屠宰性能、肉品质、肌肉抗氧化、糖酵解和脂肪酸组成等指标数据进行独立样本t检验,以分析组间差异。结果以平均值和均值标准误(SEM)表示,P<0.05表示差异显著,0.05≤P<0.10表示差异有显著趋势。

2 结果与分析

2.1 饲粮添加RPG对运输前后牦牛血浆氧化应激指标的影响

表2可知,运输前CT组与RPG组牦牛血浆MDA和COR浓度无显著差异(P>0.05)。运输后,与CT组相比,RPG组血浆MDA浓度显著降低(P<0.05),血浆COR浓度有下降的趋势(P=0.073)。
表2 饲粮添加RPG对运输前后牦牛血浆氧化应激指标的影响

Table 2 Effects of dietary RPG supplementation on plasma oxidative stress indices of yaks pre- and post- transportation

项目
Items
时间
Time
CT组
CT group
RPG组
RPG group
均值标准误
SEM
P
P-value

丙二醛
MDA/(μmol/L)
运输前Pre-transportation 1.84 1.88 0.229 0.841
运输后Post-transportation 4.62a 2.73b 0.394 0.007

皮质醇
COR/(μg/L)
运输前Pre-transportation 17.68 18.40 0.838 0.684
运输后Post-transportation 47.83 43.89 1.104 0.073

同行数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 饲粮添加RPG对运输应激牦牛屠宰性能的影响

表3可知,CT组与RPG组牦牛宰前活重、胴体重、净肉重、屠宰率、净肉率和肉骨比均无显著差异(P>0.05)。
表3 饲粮添加RPG对运输应激牦牛屠宰性能的影响

Table 3 Effects of dietary RPG supplementation on slaughter performance of yaks under transportation stress

项目
Items
CT组
CT group
RPG组
RPG group
均值标准误
SEM
P
P-value
宰前活重Live weight before slaughter/kg 160.51 163.28 5.388 0.372
胴体重Carcass weight/kg 70.19 72.06 2.731 0.152
净肉重Net meat weight/kg 53.18 53.54 1.750 0.693
屠宰率Dressing percentage/% 43.74 44.14 1.043 0.771
净肉率Net meat percentage/% 33.14 32.82 0.915 0.468
肉骨比Meat to bone ratio 3.31 3.23 0.166 0.370

2.3 饲粮添加RPG对运输应激牦牛背最长肌肉品质的影响

表4可知,与CT组相比,RPG组背最长肌pH45 min和pH24 h显著降低(P<0.05),背最长肌肌内脂肪含量显著提高(P<0.05)。2组间背最长肌L*、a*、b*值、水分、CP、Ash含量及滴水损失、蒸煮损失均无显著差异(P>0.05)。
表4 饲粮添加RPG对运输应激牦牛背最长肌肉品质的影响

Table 4 Effects of dietary RPG supplementation on meat quality of longissimus dorsi of yaks under transportation stress

项目
Items
CT组
CT group
RPG组
RPG group
均值标准误
SEM
P
P-value
pH45 min 6.56a 6.22b 0.083 0.013
pH24 h 6.05a 5.47b 0.073 <0.001
亮度L* 30.57 31.24 0.221 0.122
红度a* 17.72 17.16 0.304 0.372
黄度b* 8.15 7.97 0.102 0.479
滴水损失Drip loss/% 1.62 1.58 0.071 0.249
蒸煮损失Cooking loss/% 31.87 31.03 0.277 0.132
水分Moisture/% 74.27 75.19 0.693 0.119
粗蛋白质CP/% 21.10 21.44 0.493 0.373
肌内脂肪IMF/% 3.61b 4.38a 0.172 0.030
粗灰分Ash/% 1.07 1.02 0.038 0.538

2.4 饲粮添加RPG对运输应激牦牛背最长肌抗氧化指标的影响

表5可知,CT组与RPG组牦牛背最长肌SOD、GSH-Px、CAT活性和T-AOC及MDA浓度均无显著差异(P>0.05)。
表5 饲粮添加RPG对运输应激牦牛背最长肌抗氧化能力的影响

Table 5 Effects of dietary RPG supplementation on antioxidant indices of longissimus dorsi of yaks under transportation stress

项目
Items
CT组
CT group
RPG组
RPG group
均值标准误
SEM
P
P-value
超氧化物歧化酶SOD/(U/mg prot) 23.88 24.54 0.582 0.244
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 32.07 33.86 0.934 0.350
过氧化氢酶CAT/(U/mg prot) 1.81 1.94 0.227 0.218
总抗氧化能力T-AOC/(U/mg prot) 0.82 0.80 0.097 0.776
丙二醛MDA/(nmol/g prot) 2.18 2.06 0.307 0.401

2.5 饲粮添加RPG对运输应激牦牛背最长肌糖酵解指标的影响

表6可知,与CT组相比,RPG组背最长肌PK、HK、PFK活性及GLY、G6P浓度显著提高(P<0.05),背最长肌LA浓度显著降低(P<0.05),GP显著提高(P<0.05)。CT组与RPG组牦牛肌肉GLU浓度无显著差异(P>0.05)。
表6 饲粮添加RPG对运输应激牦牛背最长肌糖酵解指标的影响

Table 6 Effects of dietary RPG supplementation on glycolysis indices of longissimus dorsi of yaks under transportation stress

项目
Items
CT组
CT group
RPG组
RPG group
均值标准误
SEM
P
P-value
丙酮酸激酶PK/(U/g) 0.11b 0.14a <0.001 0.006
己糖激酶HK/(U/g) 0.66b 0.97a 0.039 <0.001
果糖-6-磷酸激酶PFK/(U/g) 0.37b 0.43a 0.012 0.018
糖原GLY/(μmol/g) 2.46b 6.15a 0.456 <0.001
葡萄糖GLU/(μmol/g) 1.97 2.03 0.082 0.501
葡萄糖-6-磷酸G6P/(μmol/g) 1.49b 2.46a 0.126 0.005
乳酸LA/(μmol/g) 71.92a 65.96b 0.986 <0.001
糖酵解潜力GP/(μmol/g) 83.78b 87.25a 0.852 0.037

2.6 饲粮添加RPG对运输应激牦牛背最长肌脂肪酸组成的影响

表7可知,与CT组相比,RPG组背最长肌C18∶1n9t含量显著降低(P<0.05),背最长肌C18∶3n3和n-3多不饱和脂肪酸(PUFAs)含量显著提高(P<0.05)。因此,RPG组背最长肌n-6 PUFAs/n-3 PUFAs显著低于CT组(P<0.05)。2组间背最长肌其他脂肪酸含量无显著差异(P>0.05)。
表7 饲粮添加RPG对运输应激牦牛背最长肌脂肪酸组成的影响

Table 7 Effects of dietary RPG supplementation on fatty acid composition of longissimus dorsi of yaks under transportation stress

项目
Items
CT组
CT group
RPG组
RPG group
均值标准误
SEM
P
P-value
C4∶0/% 0.02 0.02 0.001 0.756
C12∶0/% 0.07 0.06 0.002 0.210
C14∶0/% 1.68 1.71 0.017 0.203
C15∶0/% 0.31 0.33 0.004 0.406
C16∶0/% 23.63 23.19 0.220 0.325
C17∶0/% 3.61 3.65 0.028 0.511
C18∶0/% 15.12 15.16 0.174 0.930
C20∶0/% 0.16 0.16 0.004 0.873
C21∶0/% 0.31 0.29 0.007 0.215
C14∶1/% 0.20 0.21 0.008 0.268
C15∶1/% 0.76 0.78 0.022 0.230
C16∶1/% 4.88 5.00 0.133 0.566
C17∶1/% 1.14 1.19 0.093 0.114
C18∶1n9t/% 1.19a 1.04b 0.062 <0.001
C18∶1n9c/% 30.58 30.81 0.551 0.407
C18∶2n6c/% 7.83 7.52 0.112 0.115
C18∶3n6/% 0.13 0.14 0.009 0.484
C18∶3n3/% 0.52b 0.58a 0.052 0.016
C20∶3n6/% 0.60 0.59 0.030 0.527
C20∶4n6/% 5.23 5.19 0.203 0.734
C20∶5n3/% 0.71 0.73 0.067 0.537
C22∶6n3/% 0.37 0.37 0.026 0.569
SFAs/% 44.91 44.54 0.955 0.501
MUFAs/% 38.77 39.01 0.628 0.441
PUFAs/% 15.38 15.11 0.474 0.294
n-6 PUFAs/% 13.65 13.30 0.233 0.163
n-3 PUFAs/% 1.60b 1.68a 0.074 0.028
n-6 PUFAs/n-3 PUFAs 8.53a 7.94b 0.167 0.005

SFAs:饱和脂肪酸 saturated fatty acids;MUFAs:单不饱和脂肪酸 monounsaturated fatty acids;PUFAs:多不饱和脂肪酸 polyunsaturated fatty acids。

2.7 饲粮添加RPG对运输应激牦牛背最长肌代谢物的影响

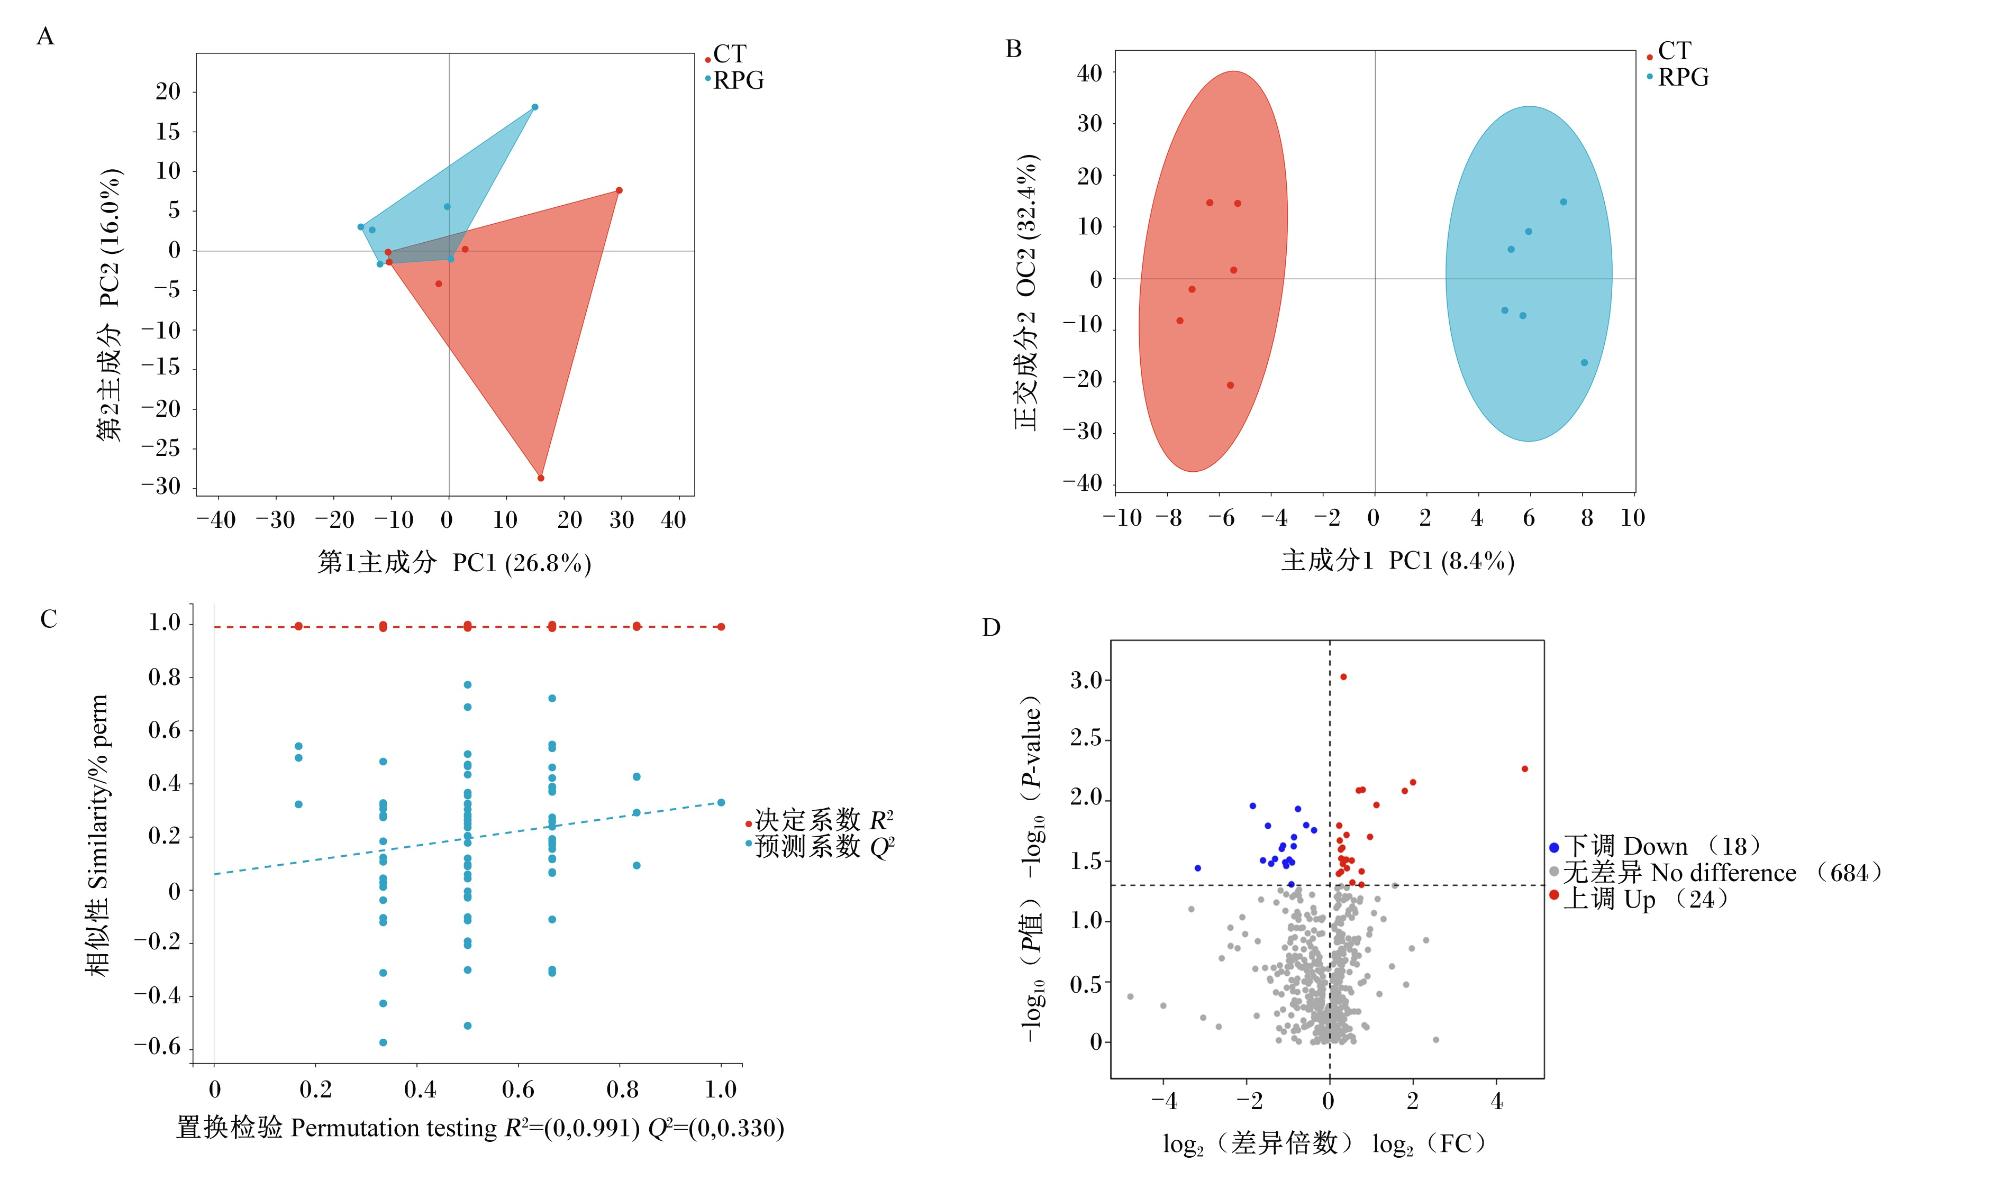
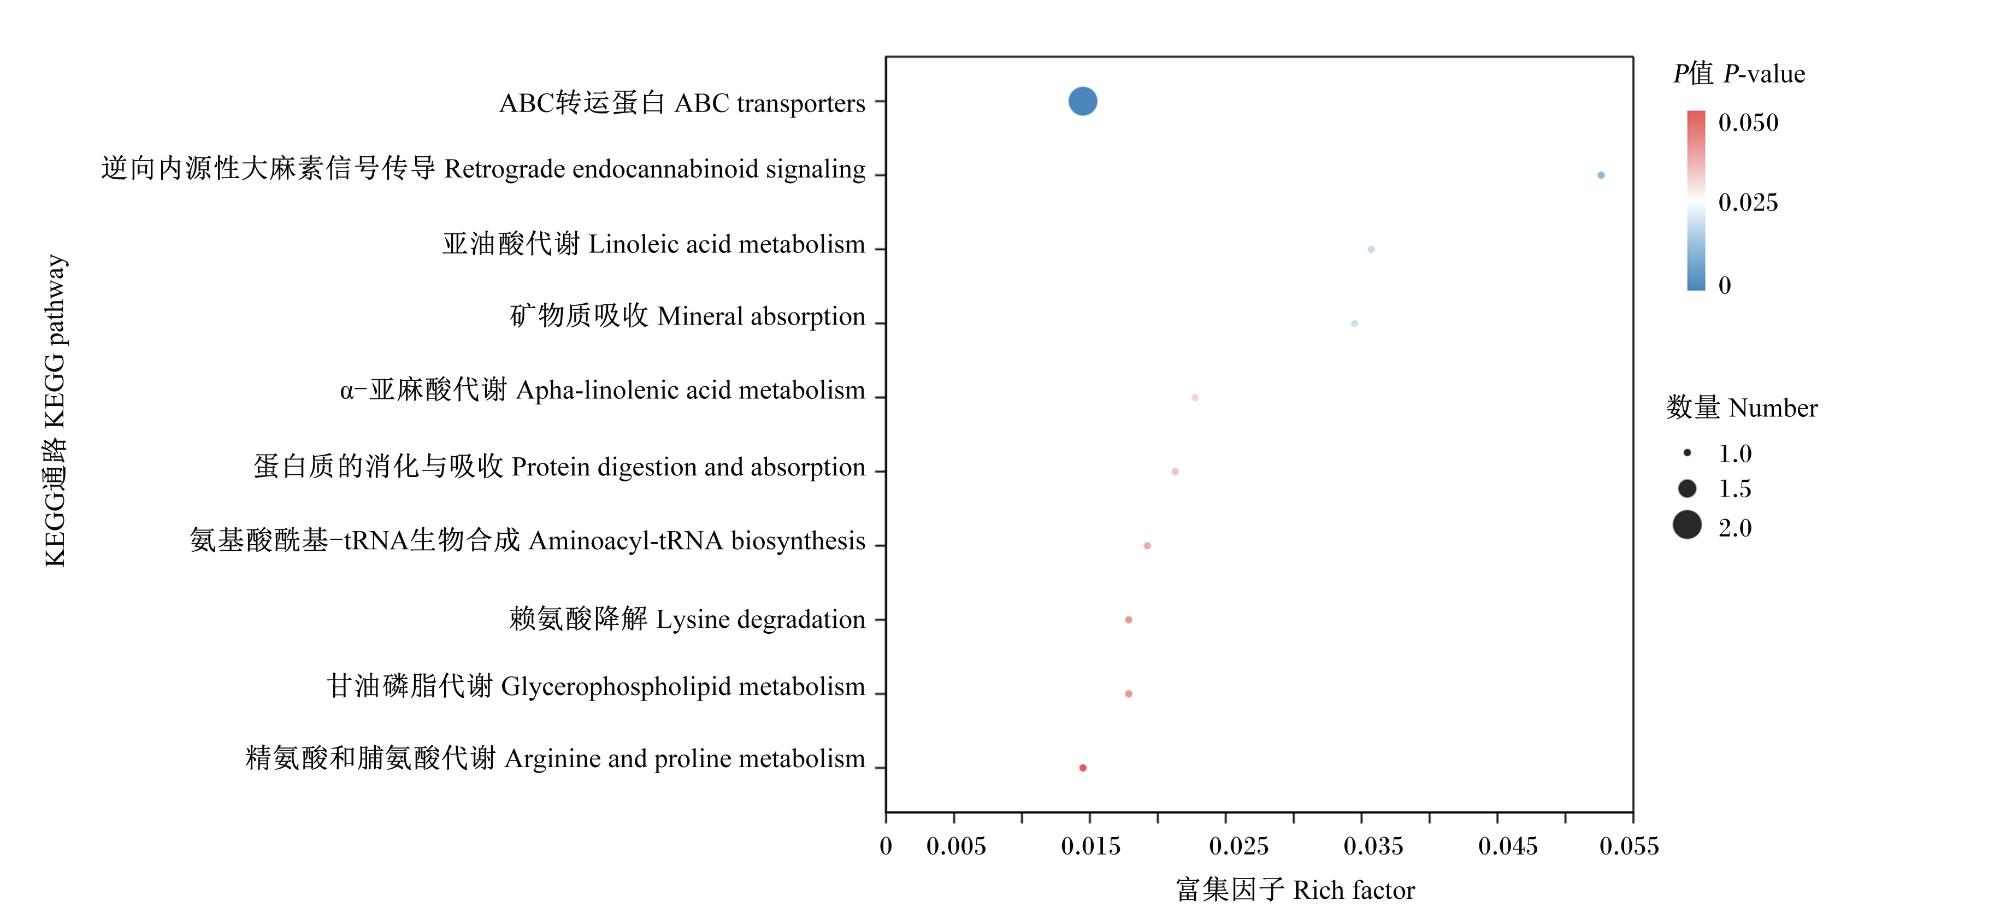
PCA结果(图1-A)显示,CT组与RPG组背最长肌代谢物存在明显分离,第1主成分和第2主成分贡献率分别为26.8%和16.0%。进一步进行OPLS-DA,可在保留模型预测能力的前提下,有效减少模型的复杂度和增强模型的解释能力。OPLS-DA得分图(图1-B)与置换检验结果(图1-C)证实,该模型稳定可靠,2组背最长肌代谢谱差异显著(P<0.05)。以VIP>2,P<0.05为筛选标准,共鉴定得到42个差异代谢物,其中24个显著上调、18个显著下调(图1-D)。由表8可知,与CT组相比,RPG组背最长肌中上调差异代谢物包括磷脂酰胆碱[15∶0/18∶1(11Z)]、2-(异丙基磺酰基)乙胺、姜烯酚、磷脂酰胆碱[18∶1(9Z)/15∶0]等;下调差异代谢物包括磷脂酰胆碱(21∶0/10∶0)、3-羟基十三烷酰肉碱、L-脯氨酸等。KEGG富集分析(图2)结果表明,RPG组与CT组背最长肌差异代谢物主要富集于ABC转运蛋白、逆向内源性大麻素信号传导、亚油酸代谢及矿物质吸收等通路。
图1 CT组与RPG组背最长肌代谢物PCA得分图(A)、OPLS-DA得分图(B)、置换检验结果(C)和差异火山图(D)

CT:CT组 CT group;RPG:RPG组 RPG group。下图同 the same as below。

Fig.1 PCA score plot (A), OPLS-DA score plot (B), permutation test (C) and differential volcano plot (D) of metabolites in longissimus dorsi between CT group and RPG group

表8 饲粮添加RPG对运输应激牦牛背最长肌代谢物的影响

Table 8 Effects of dietary RPG supplementation on metabolites in longissimus dorsi of yaks under transportation stress

差异代谢物
Differential metabolites
变量投影
重要度
VIP
差异倍数
FC
P
P-value
趋势
Trend
磷脂酰胆碱[15∶0/18∶1(11Z)] PC[15∶0/18∶1(11Z)] 2.51 1.26 0.001 上调
2-(异丙基磺酰基)乙胺2-(isopropylsulfonyl) ethanamine 2.24 1.72 0.008 上调
姜烯酚Shogaol 2.23 1.61 0.008 上调
磷脂酰胆碱[18∶1(9Z)/15∶0] PC[18∶1(9Z)/15∶0] 2.23 3.99 0.007 上调
磷脂酰胆碱[O-16∶0/20∶5(5Z,8Z,11Z,14Z,17Z)]
PC[O-16∶0/20∶5(5Z,8Z,11Z,14Z,17Z)]
2.22 3.47 0.008 上调
谷氨酰缬氨酸Glutamylvaline 2.13 2.17 0.011 上调
溶血磷脂酰胆碱[0∶0/20∶4(5Z,8Z,11Z,14Z)]
LysoPC[0∶0/20∶4(5Z,8Z,11Z,14Z)]
2.11 1.32 0.019 上调
4-三甲基铵基丁酸4-trimethylammoniobutanoic acid 2.08 1.17 0.016 上调
(10Z)-5-乙基-1-氧杂-4-氮杂环十五碳-10-烯-15-酮
(10Z)-5-ethyl-1-oxa-4-azacyclopentadec-10-en-15-one
2.07 1.23 0.024 上调
溶血磷脂酰乙醇胺[0∶0/22∶5(7Z,10Z,13Z,16Z,19Z)]
LysoPE[0∶0/22∶5(7Z,10Z,13Z,16Z,19Z)]
2.03 1.20 0.025 上调
磷脂酰胆碱(21∶0/10∶0) PC(21∶0/10∶0) 2.28 0.28 0.011 下调
3-羟基十三烷酰肉碱3-hydroxytridecanoyl carnitine 2.20 0.59 0.012 下调
曲培莫司Tresperimus 2.17 0.36 0.016 下调
L-脯氨酸L-proline 2.11 0.67 0.016 下调
磷脂酰胆碱[18∶0/22∶6(4Z,7Z,10Z,13Z,16Z,19Z)]
PC[18∶0/22∶6(4Z,7Z,10Z,13Z,16Z,19Z)]
2.04 0.77 0.018 下调
磷脂酰乙醇胺[O-18∶1/20∶4(5Z,8Z,11Z,14Z)]
PE[O-18∶1/20∶4(5Z,8Z,11Z,14Z)]
2.01 0.53 0.032 下调
图2 差异代谢物KEGG富集分析

Fig.2 KEGG enrichment analysis of differential metabolites

3 讨论

3.1 饲粮添加RPG对牦牛运输前、后血浆氧化应激指标的影响

除动物生理变化外,血浆COR浓度是评估运输应激的常见指标。在动物运输过程中,多种应激源共同导致机体能量消耗增加,驱动能量需求上调,此时机体持续激活下丘脑-垂体-肾上腺皮质(HPA)轴级联激素释放,最终促进COR合成以调节能量代谢[12]。Jung等[13]报道,未经抗氧化剂干预的奶牛在公路运输后表现出比未运输奶牛更高的血浆COR浓度。虽然本研究未提供未经公路运输牦牛的数据,但CT组在运输后血浆COR浓度较运输前提高了170.5%,这提示了运输应激的发生。本研究结果表明,RPG的添加可潜在缓解运输应激导致的血浆COR浓度上升,这可能是由于RPG以一种高效、精准的供能方式维持了牦牛的能量供需平衡,从而削弱了“能量不足信号”对HPA轴的激活作用,导致血浆COR浓度下降。MDA是脂质过氧化反应的终产物,其浓度升高意味着机体抗氧化系统受损。研究表明,运输应激可破坏线粒体功能或调控炎症反应,从而促进活性氧自由基(ROS)的大量释放并攻击机体抗氧化酶,造成脂质过氧化损伤,导致血液中MDA浓度升高[1,14]。本研究发现,运输应激使CT组牦牛血浆MDA浓度提高了151.1%;饲粮添加RPG虽然对常规状态下(运输前)血浆MDA浓度无显著影响,但可显著缓解运输应激引发的氧化损伤。这可能是由于RPG为SOD、GSH-Px等抗氧化酶的合成提供了能量,从而能够有效抵抗运输应激产生的ROS。Sun等[15]的研究结果证实了这一点,即饲喂GLU可提高鹅肥肝GSH-Px活性、谷胱甘肽(glutathione,GSH)浓度,降低ROS和MDA浓度。

3.2 饲粮添加RPG对运输应激牦牛屠宰性能的影响

据报道,运输应激会导致肉牛体重损失,其主要原因包括瘤胃内容物、粪便和尿液的排出以及组织细胞内外液体的流失[16-17]。研究表明,运输后及时补充饲粮和水可在一定程度上缓解运输应激造成的山羊体重损失,因为这能为动物提供能量,从而维持血糖稳定[18]。Siegmann等[19]进一步证实了能量补充对于运输应激的缓解作用,即与摄入少量牛奶相比,在中距离运输前提供较多的乳制品能够减少犊牛的体重损失,但这一措施对长距离公路运输无效。本研究中,运输前饲粮添加RPG虽然在数据上显示能够减少运输应激导致的牦牛体重损失,但效果并不显著。这可能是由于RPG的添加剂量尚不足以维持本研究运输距离下的能量平衡,其剂量效应将在未来研究中进一步探索。此外,管鹏宇等[20]报道,饲粮添加RPG并未改善肉牛的胴体重、屠宰率、净肉率和肉骨比。本研究中在运输应激牦牛中得到的结果与之一致,说明RPG对屠宰性能的调控效果有限。

3.3 饲粮添加RPG对运输应激牦牛肉品质和肌肉糖酵解的影响

pH是评价牛肉品质的重要指标,可反映宰后肌肉的能量代谢状态,并与肉色、保水性、嫩度及风味密切相关[21]。据报道,运输应激会降低羔羊肌肉GLY浓度,提升LA浓度与极限pH,从而损害肉品质[4]。因此,调控肌肉糖酵解速率与糖酵解程度是稳定宰后肌肉pH的关键。本研究中,饲粮添加RPG不仅显著增加了运输应激状态下牦牛背最长肌GLY和G6P等糖酵解底物的浓度,还提高了糖酵解关键酶(PK、PFK和HK)的活性,最终提高了GP,提示在运输前补充RPG能够促进牦牛宰后的肌肉糖酵解。这可能是由于在运输应激介导的能量负平衡下,RPG的添加缩小了牦牛的能量供需缺口,抑制了运输过程中的糖酵解速率,使得GLY消耗及LA合成减少[22]。这种肌肉糖酵解的适应性变化以及GLY实际储备量的增加,导致RPG组牦牛背最长肌的pH45 min和pH24 h显著降低。与之相似,部分抗氧化剂也可通过抵抗运输应激增强糖酵解,从而降低肉质pH,改善肉品质[23-24]。虽然L*和a*值被认为与肉中GLY浓度和GP密切相关[25],但本研究中RPG对糖酵解的调控并未反映在牦牛肉色上,与管鹏宇等[20]在肉牛上的研究结果一致。
研究表明,饲喂RPG可提高绵羊背最长肌EE含量,从而提升羊肉营养价值[6]。在运输应激状态下,RPG维持肉质养分含量的作用更为突出。公路运输过程会增加肾上腺素等应激激素的释放,加速脂肪动员,促使皮下和肌内脂肪分解为游离脂肪酸供能,从而导致脂肪含量降低。本研究中,饲粮添加RPG促进了运输应激牦牛背最长肌肌内脂肪的沉积,这可能是由于RPG通过高效供能提高了胰岛素水平,从而抑制了激素敏感脂肪酶的活性,减少了肌内脂肪的分解[26]。此外,GLU还被证明在能量充足的情况下可通过肝脏的从头脂肪生成直接转化为甘油三酯,并储存在肌内脂肪细胞中[27-28],这可能是RPG提高牦牛背最长肌肌内脂肪含量的另一个潜在原因。然而,RPG并未提高运输后牦牛背最长肌水分、CP和Ash含量。

3.4 饲粮添加RPG对运输应激牦牛肌肉抗氧化能力的影响

本研究中,虽然运输前饲粮添加RPG能够提高运输后牦牛的血浆抗氧化能力,但对肌肉中抗氧化酶活性和MDA浓度的改善效果有限。这可能是由于机体在应激状态下的能量分配优先级顺序为“系统”高于“局部”,有限的RPG会优先供应能量给供肝脏和红细胞,维持血液抗氧化体系稳态,而肌肉抗氧化系统对短期能量供给的响应则相对滞后。此外,RPG作为一种供能物质,无法提供SOD、GSH等抗氧化物质合成所需的氨基酸或微量元素[29],这也在一定程度上限制了肌肉抗氧化能力的改善。

3.5 饲粮添加RPG对运输应激牦牛肌肉脂肪酸组成的影响

本研究结果表明,牦牛背最长肌中以C18∶1n9c、C16∶0和C18∶0含量较高,该脂肪酸分布特征与肉牛[11]相关研究报道一致。已有研究证实,RPG可通过减少脂肪动员来改善奶牛的能量平衡[30]。而本研究发现,饲粮添加RPG对运输应激牦牛背最长肌饱和脂肪酸(SFAs)含量无显著影响。C18∶1n9t属于反式单不饱和脂肪酸(MUFAs),可通过促进炎症反应降低牛肉食用安全性,增加消费者的顾虑。本研究中,饲粮添加RPG显著降低了运输应激牦牛背最长肌C18∶1n9t含量,这可能是瘤胃氢化效率变化的连锁反应。Federiconi等[31]研究发现,提升饲粮能量水平可提高丁酸弧菌属丰度,这可能促进了瘤胃不饱和脂肪酸的氢化,导致其含量降低,并最终反映在肌肉中。C18∶3n3被认为具有心血管保护和抗炎等生物学功能。本研究中,饲粮添加RPG显著提高了运输应激牦牛背最长肌C18∶3n3含量,这可能是由于RPG能够快速提供能量,提高血糖水平,从而替代了脂肪氧化分解供能途径,从而降低C18∶3n3的分解消耗。肌肉C18∶3n3积累量的增加直接导致n-3 PUFAs含量提高,间接优化了n-6 PUFAs/n-3 PUFAs,进而改善了牦牛肉的营养保健价值。相关研究表明,n-3 PUFAs可抑制肝脏脂肪从头合成途径,摄入该类脂肪酸可能有助于降低非酒精性脂肪性肝病和胰岛素抵抗的风险[32]

3.6 饲粮添加RPG对运输应激牦牛肌肉代谢物的影响

在本研究中,饲粮添加RPG上调了运输应激牦牛背最长肌中多种磷脂类代谢物的含量。其中,磷脂酰胆碱[15∶0/18∶1(11Z)]和磷脂酰胆碱[18∶1(9Z)/15∶0]是肌肉细胞膜的重要组成部分,其含量提高可能有助于缓解运输应激导致的肌肉损伤。溶血磷脂酰胆碱[0∶0/20∶4(5Z,8Z,11Z,14Z)]和溶血磷脂酰乙醇胺[0∶0/22∶5(7Z,10Z,13Z,16Z,19Z)]作为磷脂代谢的中间产物,可通过参与脂肪酸β-氧化和信号传导,调控肌肉能量代谢[33]。Zhang等[34]报道,溶血磷脂酰胆碱含量的增加对奶牛抗氧化能力与免疫功能具有积极影响。磷脂酰乙醇胺和磷脂酰胆碱还被认为与一些风味挥发性物质合成密切相关,该类物质积累可提升肉品香气[35]。值得注意的是,RPG的添加还上调了牦牛肉中一些功能性小分子含量,例如姜烯酚——其可有效缓解氧化损伤和炎症反应[36]。此外,RPG的添加下调了3-羟基十三烷酰肉碱等肉碱衍生物含量,这说明增加能量供应可减少脂肪的过度动员,降低脂肪酸β-氧化速率,进而纠正运输应激诱发的能量代谢紊乱。总之,饲粮添加RPG改变了运输应激牦牛背最长肌中部分代谢物的含量,这些代谢物主要通过调节脂质代谢,参与ABC转运蛋白、逆向内源性大麻素信号传导、亚油酸代谢、矿物质吸收等通路,进而影响牦牛肉的品质和功能性。

4 结论

运输前饲粮添加RPG可降低运输后牦牛的血浆氧化应激水平,但对肌肉抗氧化能力无明显改善作用。同时,RPG能够增强肌肉糖酵解,优化肌肉pH与脂肪酸组成,进而改善牦牛肉品质与营养特性。代谢组学进一步揭示,RPG可调控肌肉中溶血磷脂酰胆碱、姜烯酚及3-羟基十三烷酰肉碱等代谢物含量,这可能是其影响牦牛肉品质的潜在分子基础。
[1]
QI J C, HUANG F Y, GAN L L, et al. Multi-omics investigation into long-distance road transportation effects on respiratory health and immunometabolic responses in calves[J]. Microbiome, 2024, 12(1):242.

DOI PMID

[2]
DETERS E L, HANSEN S L. Long-distance transit alters liver and skeletal muscle physiology of beef cattle[J]. Animal, 2022, 16(6):100555.

DOI

[3]
KADIM I T, MAHGOUB O, AL-KINDI A, et al. Effects of transportation at high ambient temperatures on physiological responses,carcass and meat quality characteristics of three breeds of Omani goats[J]. Meat Science, 2006, 73(4):626-634.

DOI

[4]
LI X, XIA A Q, CHEN L J, et al. Effects of lairage after transport on post mortem muscle glycolysis,protein phosphorylation and lamb meat quality[J]. Journal of Integrative Agriculture, 2018, 17(10):2336-2344.

DOI

[5]
涂远璐, 汤海江, 张凯, 等. 过瘤胃胆碱和过瘤胃葡萄糖添加对围产期母羊能量负平衡的影响[J]. 江苏农业学报, 2023, 39(7):1567-1574.

TU Y L, TANG H J, ZHANG K, et al. Effects of rumen-protected choline and rumen-protected glucose on negative energy balance of periparturient ewes[J]. Jiangsu Journal of Agricultural Sciences, 2023, 39(7):1567-1574. (in Chinese)

[6]
施建川. 过瘤胃脂肪和过瘤胃葡萄糖对杜蒙萨羊生长性能、营养物质表观消化率和肉品质的影响[D]. 硕士学位论文. 银川: 宁夏大学, 2023.

SHI J C. Effects of rumen-protected fat and rumen-protected glucose on growth performance,apparent digestibility of nutrients and meat quality of Dumengsa sheep[D]. Master’s Thesis. Yinchuan: Ningxia University, 2023. (in Chinese)

[7]
National Academies of Sciences,Engineering,and Medicine. Nutrient requirements of beef cattle[S]. 8th ed.Washington,D. C.:The National Academies Press, 2016.

[8]
ZHANG H Y, GUO L, ZHANG X Y, et al. Flax seed meal improved the meat tenderness,nutritional value of fatty acids,and catalase activity of Hu lambs[J]. Meat Science, 2025, 222:109750.

DOI

[9]
MONIN G, SELLIER P. Pork of low technological quality with a normal rate of muscle pH fall in the immediate post-mortem period:the case of the Hampshire breed[J]. Meat Science, 1985, 13(1):49-63.

DOI

[10]
YAO K, FENG L, JIANG W D, et al. The role of vitamin E in polyunsaturated fatty acid synthesis and alleviating endoplasmic reticulum stress in sub-adult grass carp (Ctenopharyngodon idella)[J]. Animal Nutrition, 2024, 16:275-287.

DOI

[11]
LIU W J, GAO H X, HE J J, et al. Effects of dietary Allium mongolicum Regel powder supplementation on the growth performance,meat quality,antioxidant capacity and muscle fibre characteristics of fattening Angus calves under heat stress conditions[J]. Food Chemistry, 2024, 453:139539.

DOI

[12]
LI Y J, MAO K, ZANG Y T, et al. Revealing the developmental characterization of rumen microbiome and its host in newly received cattle during receiving period contributes to formulating precise nutritional strategies[J]. Microbiome, 2023, 11(1):238.

DOI PMID

[13]
JUNG D J S, KIM D H, BEAK S H, et al. Effects of vitamin E and selenium administration on transportation stress in pregnant dairy heifers[J]. Journal of Dairy Science, 2023, 106(12):9576-9586.

DOI PMID

[14]
刘汝杰, 李明晔, 孙泽威, 等. 运输前灌服谷氨酰胺对运输应激雏鸡肠黏膜上皮细胞线粒体功能及坏死性凋亡信号通路的影响[J]. 动物营养学报, 2023, 35(2):1270-1278.

DOI

LIU R J, LI M Y, SUN Z W, et al. Effects of glutamine oral administration before transportation on mitochondrial function and necrotic apoptosis signal pathway of intestinal mucosal epithelial cells of chicks under transportation stress[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1270-1278. (in Chinese)

DOI

[15]
SUN Q Y, DAI E P, CHEN M, et al. Glucose-induced enhanced anti-oxidant activity inhibits apoptosis in goose fatty liver[J]. Journal of Animal Science, 2023,101:skad059.

[16]
MELÉNDEZ D M, MARTI S, HALEY D B, et al. Effect of transport and rest stop duration on the welfare of conditioned cattle transported by road[J]. PLoS One, 2020, 15(3):e0228492.

DOI

[17]
李妍, 高艳霞, 许利民, 等. 长途运输应激对西门塔尔牛体重、血液生化指标和细胞因子含量的影响[J]. 中国畜牧兽医, 2018, 45(5):1234-1240.

DOI

LI Y, GAO Y X, XU L M, et al. Effects of long-distance transportation stress on the body weight,blood biochemical indexes and cytokine contents of Simmental cattle[J]. China Animal Husbandry & Veterinary Medicine, 2018, 45(5):1234-1240. (in Chinese)

[18]
XU K, YANG K, YANG Y, et al. Supplementation of feed and water after long-duration road transportation:the effects on welfare and rumen fermentation in goats[J]. Frontiers in Veterinary Science, 2023, 10:1135666.

DOI

[19]
SIEGMANN S, VAN DIJK L L, FIELD N L, et al. Effects of pre- and post-transport feeding protocols on the metabolism and physiological status of veal calves[J]. Journal of Dairy Science, 2025, 108(8):8803-8818.

DOI

[20]
管鹏宇, 田宛鑫, 姜宁, 等. 过瘤胃胆碱和过瘤胃葡萄糖对肉牛屠宰性能、肉品质及体脂的影响[J]. 饲料工业, 2025, 46(18):81-86.

GUAN P Y, TIAN W X, JIANG N, et al. Effects of rumen-protected choline and rumen-protected glucose on slaughter performance,meat quality and body fat of beef cattle[J]. Feed Industry, 2025, 46(18):81-86. (in Chinese)

[21]
FERREIRA G A, BARRO A G, TERTO D K, et al. Sensory quality of beef with different ultimate pH values-a Brazilian perspective[J]. Meat Science, 2024, 209:109415.

DOI

[22]
李继强, 朱立贤, 仝林, 等. 宰后肌肉能量代谢对肉品质的影响研究进展[J]. 肉类研究, 2023, 37(1):31-38.

LI J Q, ZHU L X, TONG L, et al. A review of the effect of postmortem muscle energy metabolism on meat quality[J]. Meat Research, 2023, 37(1):31-38. (in Chinese)

[23]
陈聪慧. 运输应激不同干预方式对羔羊血液生化指标、肉品质及能量代谢的影响[D]. 硕士学位论文. 保定: 河北农业大学, 2023.

CHEN C H. Effects of different intervention methods on blood biochemical indices, meat quality and energy metabolism in lambs under transportation stress[D]. Master’s Thesis. Baoding: Hebei Agricultural University, 2023. (in Chinese)

[24]
ZHANG C, WANG L, ZHAO X H, et al. Dietary resveratrol supplementation prevents transport-stress-impaired meat quality of broilers through maintaining muscle energy metabolism and antioxidant status[J]. Poultry Science, 2017, 96(7):2219-2225.

DOI PMID

[25]
PRZYBYLSKI W, SIONEK B, JAWORSKA D, et al. The application of biosensors for drip loss analysis and glycolytic potential evaluation[J]. Meat Science, 2016, 117:7-11.

DOI PMID

[26]
MORIGNY P, HOUSSIER M, MAIRAL A, et al. Interaction between hormone-sensitive lipase and ChREBP in fat cells controls insulin sensitivity[J]. Nature Metabolism, 2019, 1(1):133-146.

DOI PMID

[27]
TAN W, JIANG P, ZHANG W J, et al. Posttranscriptional regulation of de novo lipogenesis by glucose-induced O-GlcNAcylation[J]. Molecular Cell, 2021, 81(9):1890-1904.e7.

DOI

[28]
LI Y H, SONG Q, GUO R, et al. Glucose metabolism through the hexosamine biosynthetic pathway drives hepatic de novo lipogenesis via promoting N-linked protein glycosylation[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2025, 328(6):G746-G759.

[29]
XIA C Y, XING X Y, ZHANG W X, et al. Cysteine and homocysteine can be exploited by GPX4 in ferroptosis inhibition independent of GSH synthesis[J]. Redox Biology, 2024, 69:102999.

DOI

[30]
ZHANG F, WANG Y P, TANG X F, et al. Changes in milk fatty acids and metabolites in dairy cows supplemented with varying levels of rumen-protected glucose during early lactation[J]. Journal of Dairy Science, 2025, 108(9):9549-9565.

DOI PMID

[31]
FEDERICONI A, GHIACCIO F, MAMMI L, et al. Changes in the rumen microbial community composition of dairy cows subjected to an acidogenic diet[J]. Journal of Dairy Science, 2024, 107(10):7810-7821.

DOI

[32]
GREEN C J, PRAMFALK C, CHARLTON C A, et al. Hepatic de novo lipogenesis is suppressed and fat oxidation is increased by omega-3 fatty acids at the expense of glucose metabolism[J]. BMJ Open Diabetes Research & Care, 2020, 8(1):e000871.

DOI

[33]
WANG Y Y, CAI Z C, SANG X H, et al. Lc-ms-based lipidomics analyses revealed changes in lipid profiles in Asian sea bass (Lates calcarifer) with dielectric barrier discharge (DBD) atmospheric plasma treatment[J]. Food Chemistry, 2024, 439:138098.

DOI

[34]
ZHANG Q, TA N, ZHANG J Z, et al. Nettle supplementation improves antioxidant status and modulates inflammatory response by altering lysophosphatidylcholines and enterolactone metabolism in dairy cows[J]. Animal Nutrition, 2025, 21:279-291.

DOI PMID

[35]
LI Y, BLANK I, LIU X, et al. Multi-omics elucidation of key odor-active compounds and their association with lipid-derived flavor precursors in textured peanut protein-based fermented sausage analogs[J]. LWT, 2025, 225:117809.

DOI

[36]
XU Y, BAI L W, CHEN X H, et al. 6-shogaol ameliorates diabetic nephropathy through anti-inflammatory,hyperlipidemic,anti-oxidative activity in db/db mice[J]. Biomedicine & Pharmacotherapy, 2018, 97:633-641.

DOI

Outlines

/