RESEARCH PAPER

Multi-Omics Mechanisms of Artemisia annua in Alleviating Growth Retardation of Japanese Eel (Anguilla japonica)

  • HE Zhenying , 1, 2, 3 ,
  • HANG Ying 1, 2, 3 ,
  • NIE Mengling 1, 2, 3 ,
  • ZHU Xiang 1, 2, 3 ,
  • REN Yuxi 1, 2, 3 ,
  • HUA Xueming , 1, 2, 3, * ,
  • LIU Liping 1, 2, 3 ,
  • LI Kang 1, 2, 3 ,
  • NI Guobin 4
Expand
  • 1 Centre for Research on Environmental Ecology and Fish Nutrition of the Ministry of Agriculture and Rural Affairs, Shanghai Ocean University, Shanghai 201306, China
  • 2 Key Laboratory of Freshwater Aquatic Genetic Resources, Ministry of Agriculture and Rural Affairs, Shanghai Ocean University, Shanghai 201306, China
  • 3 National Demonstration Center for Experimental Fisheries Science Education Shanghai Ocean University, Shanghai Ocean University, Shanghai 201306, China
  • 4 Shanghai Chongming Fisheries Technical Extension Station, Shanghai 202150, China
* professor, E-mail:

Received date: 2025-04-11

  Online published: 2026-07-14

Abstract

This study investigated the effects and mechanisms of Artemisia annua (A. annua) on the growth performance of growth-retarded Japanese eels (Anguilla japonica) using network pharmacology and untargeted metabolomics. A total of 450 growth-retarded eels with an initial body weight of (27.82±0.04) g were randomly allocated into 18 net cages (25 fish/cage), with every 3 cages serving as one group (totaling 6 groups). The groups were fed experimental diets containing 0 (AA0 group, control group), 5 (AA5 group), 10 (AA10 group), 15 (AA15 group), 20 (AA20 group), and 25 g/kg (AA25 group) A. annua for 76 days. The results showed that compared with the AA0 group, all A. annua-supplemented groups (AA5, AA10, AA15, AA20, and AA25 groups) exhibited significantly increased weight gain rate (WGR) and specific growth rate (SGR) (P<0.05), along with a significant reduced feed conversion ratio (FCR) (P<0.05). Compared with AA0 group, muscle lipid content significantly increased in the AA5, AA15, AA20, and AA25 groups (P<0.05), while muscle protein content was significantly decreased in the AA10 and AA20 groups (P<0.05). Moderate A. annua supplementation significantly enhanced foregut trypsin (AA15 and AA20 groups) and α-amylase activities (AA5, AA10, and AA15 groups) compared with the AA0 group (P<0.05). Concurrently, intestinal plica height significantly increased in the AA10, AA15, AA20, and AA25 groups (P<0.05), while plica width significantly increased in the AA15, AA20, and AA25 groups compared with the AA0 group (P<0.05). Network pharmacology analysis identified 213 overlapping targets related to both the active components of A. annua and growth retardation, with key potential regulatory targets including B-cell lymphoma 2-related protein A (BCL2A), Src tyrosine kinase (SRC), epidermal growth factor receptor A (EGFRA), protein tyrosine kinase 2ab (PTK2AB), phosphoinositide-3-kinase catalytic subunit alpha (PIK3CA), and phosphoinositide-3-kinase regulatory subunit 1 (PIK3R1). Metabolomic analysis revealed 177 potential active components from A. annua absorbed by the liver. Compared with AA0 group, 109 and 187 differentially expressed metabolites were identified in the AA10 and AA25 groups, respectively, potentially modulating bile secretion and steroid biosynthesis pathways. The above results demonstrate that A. annua promotes the growth of growth-retarded Anguilla japonica by stimulating feed intake, enhancing certain digestive enzyme activities, improving foregut morphology, and facilitating nutrient digestion and absorption, and muscle protein deposition. However, high doses may carry a risk of intestinal structural damage. The effective active components in A. annua likely exert their growth-promoting effects via multi-target regulation.

Cite this article

HE Zhenying , HANG Ying , NIE Mengling , ZHU Xiang , REN Yuxi , HUA Xueming , LIU Liping , LI Kang , NI Guobin . Multi-Omics Mechanisms of Artemisia annua in Alleviating Growth Retardation of Japanese Eel (Anguilla japonica)[J]. Chinese Journal of Animal Nutrition, 2026 , 38(7) : 5306 -5323 . DOI: 10.12418/CJAN2026.425

为应对全球人口增长带来的食物需求压力,水产养殖已成为弥补捕捞渔业供给不足的关键产业[1]。在水产动物的选育与养殖中,生长性能是评价品种特性、饲料效果及管理策略的核心指标,直接影响生产效率与经济效益。然而,鱼类生长受遗传背景、发育阶段、饲料营养及环境等多重因素调控[2-3],养殖群体普遍存在的生长异质性现象可能引发资源竞争与同类相残。在日本鳗鲡(Anguilla japonica)中也存在这一现象,生长缓慢的个体(俗称僵鳗)比例可达总数的10%~20%。尽管分级饲养可缓解个体生长差异,但实际生产中存在操作成本高且易损伤鱼体等缺点[4-5],因此探索替代性方案具有重要意义。有研究发现,生长异质性可能与个体间激素、代谢及食欲水平密切相关[6],这为通过调控代谢改善群体生长异质性提供了新思路。
药用植物活性成分不仅具有促生长、调节摄食等功效[7-8],其应用形式亦灵活多样[9]。然而,毒理学研究表明,药用植物的不当使用可能对鱼类健康构成潜在风险[10]。因此,深入研究药用植物活性成分的作用机制对于确保其在水产养殖中的安全、有效应用至关重要。中药多组分体系的作用机制具有多维度特性。以口服给药为例,药物首先在胃肠被吸收进入血液循环,随后转运至多个靶器官或组织;当靶部位的药物浓度达到有效阈值时,即可引发相应药理效应;药物最终主要在肝脏内经药酶催化代谢,代谢产物通过胆汁或尿液等途径排出体外,完成生物转化与排泄过程[11-12]
黄花蒿(Artemisia annua,A. annua)有着独特香味及苦味[13-14],这种双重风味可能会对日本鳗鲡的摄食产生影响。此外,黄花蒿中活性成分种类丰富,主要涵盖黄酮类、倍半萜类、香豆素类及酚酸类等化合物,各类活性成分展现出显著的结构与功能多样性。基于此,本试验通过配制添加不同水平黄花蒿的饲料,重点探究黄花蒿对生长阻滞日本鳗鲡生长、消化能力与营养沉积的调控作用,并基于网络药理学和肝脏代谢组学的多组学整合分析,解析黄花蒿中活性成分调控日本鳗鲡生长和代谢的机制,为开发新型鳗鲡促生长剂提供理论依据。

1 材料与方法

1.1 伦理声明

本试验已经上海海洋大学实验动物伦理委员会批准(批准号:SHOU-DW-2022-018),试验过程中严格遵守上海海洋大学实验动物伦理规范。

1.2 试验材料

黄花蒿产自上海市崇明区,剔除老茎后,取完整枝条及叶片晒干,粉碎过100目筛,混匀密封保存待用。经测定,黄花蒿的水分含量为5.95%、粗灰分含量为43.56%、粗蛋白质含量为10.94%、粗脂肪含量为12.95%。

1.3 试验设计

试验用日本鳗鲡于2022年7月购自江苏省海安市某养殖场。经1年养殖后,对这一批次的日本鳗鲡进行生长评估(从3个养殖池各随机抽取30尾,共90尾),测得平均体重为(380.00±57.66) g,并据此界定“正常生长”群体(接近平均值)和“生长阻滞”群体(显著低于平均值)。基于这一标准,选取450尾健康但生长表现明显滞后的日本鳗鲡[初始体重为(27.82±0.04) g],随机分配至18个网箱(25尾/箱),投喂鳗鲡粉状商品饲料进行2周的适应后,随机分为6组,每组分配3个网箱。在鳗鲡粉状商品饲料中分别添加0(AA0组,作为对照组)、5(AA5组)、10(AA10组)、15(AA15组)、20(AA20组)及25 g/kg(AA25组)黄花蒿,配制6种试验饲料,对应饲喂6组日本鳗鲡76 d。鳗鲡粉状商品饲料由上海市崇明区水产技术推广站提供,主要原料有鱼粉、α-淀粉、鱼油、维生素及矿物质,其常规营养成分含量为:水分6.48%、粗灰分12.40%、粗蛋白质46.76%、粗脂肪5.17%。
养殖试验在上海崇东水产养殖专业合作社的3个直径为6 m、体积约为30 m3的圆形养殖池中进行,各池配备独立的循环系统、推泵及气泵,以维持水体24 h循环流动及增氧。沿池边共悬挂18个不锈钢网箱(1.0 m×1.0 m×0.7 m),每个池挂6个网箱(含每组的1个重复)。投喂前,按照试验设计的量准确称取黄花蒿与鳗鲡粉状商品饲料,黄花蒿采用等量逐级稀释确保均匀性,随后按粉状料∶水(m/v)=1∶1.2的比例加水揉匀成饼状,经食台定点(16:00)投喂,日投喂量为鳗鲡体重的1%~4%,根据实际摄食量调整并记录残饵量,试验周期为76 d。养殖期间水温25~30 ℃,溶氧浓度≥6 mg/L,氨氮浓度≤0.3 mg/L,定期吸污换水。

1.4 样品采集

饲养试验结束后,禁食24 h,随后对每个重复的试验鱼进行计数并称重记录,将超过该网箱平均体重的试验鱼(脱僵鳗鲡)计数称重;每个重复随机取7尾试验鱼,用丁香酚麻醉后,测量体长、体重、内脏团重、肝脏重及肠长后取胃、肠道、肌肉组织,转入-20 ℃冰箱中保存,并取适量前肠组织,用Bouin氏液固定,以待后续测定及切片制作;每个重复另随机取3尾试验鱼,麻醉后用70%酒精擦拭体表,取肝脏先存于液氮中后转至-80 ℃冰箱,用于代谢组学分析。

1.5 生长和形体指标计算

摄食率(FR,%/d)=100×TFI/[D×(MFW+MIW)/2];
成活率(SR,%)=100×Nt/Ni;
增重率(WGR,%)=100×(MFW-MIW)/MIW;
特定生长率(SGR,%/d)=100×ln(MFW/MIW)/D;
饲料系数(FCR)=TFI/(TFW-TIW+TWD);
蛋白质效率(PER)=(MFW-MIW)/(TFI×FCP);
肥满度(CF,g/cm3)=100×W/L3;
脏体比(VSI,%)=100×Wv/W;
肝体比(HSI,%)=100×Wh/W;
肠体比(ISI,%)=100×Li/L;
脱僵率(%)=100×Ne/Nt;
脱僵鳗鲡增重率(%)=100×[AFW-AIW]/AIW
式中:D为养殖试验天数;TFI为养殖过程中的饲料摄入量;MIW为平均初始体重;MFW为平均终末体重;Ni为初始尾数;Nt为终末尾数;TIW为初始总重;TFW为终末总重;TWD为死亡总重;FCP为饲料中粗蛋白质含量;W为体重;L为体长;Wv为完整内脏团的重量;Wh为肝脏的重量;Li为肠长;Ne为超过该网箱平均体重的试验鱼尾数;AIW为脱僵鳗鲡初始均重;AFW为脱僵鳗鲡终末均重。

1.6 肌肉营养组成测定

肌肉水分含量参照GB 5009.3—2016采用105 ℃恒温干燥法测定,蛋白质含量参照GB 5009.5—2016采用凯氏定氮法测定,脂肪含量采用三氯甲烷-甲醇法测定,灰分含量参照GB 5009.4—2016测定。

1.7 胃肠道消化酶活性测定

使用南京建成生物工程研究所生产的试剂盒测定肠道中胰蛋白酶、α-淀粉酶和脂肪酶以及胃中胃蛋白酶、α-淀粉酶和脂肪酶活性,具体操作参照试剂盒说明书进行。

1.8 前肠组织形态观察

取固定后的前肠组织块,制作石蜡切片并进行苏木精-伊红(HE)染色,使用 SOPTOP ICX41倒置荧光显微镜及Motic Images Plus 3.1软件测量皱襞高度、皱襞宽度及肌层厚度。

1.9 黄花蒿有效活性成分收集及靶点预测

利用中药系统药理学数据库和分析平台(TCMSP: https://www.tcmsp-e.com/tcmsp.php),以口服生物利用度(OB≥30%)和类药性(DL≥0.18)为筛选条件,得到候选成分,通过PubChem数据库(https://pubchem.ncbi.nlm.nih.gov)获取对应化合物的SMILES ID(化学结构线性表示法),利用药代动力学预测工具平台(SwissADME: http://www.swissadme.ch)对候选成分进行二次筛选,要求胃肠道吸收效率(GI absorption)为High,且类药性评价至少满足2项Yes标准,获得符合的有效活性成分。通过SwissTargetPrediction平台(http://www.swisstargetprediction.ch)对有效活性成分进行靶点预测。
在GeneCards数据库(https://www.genecards.org)搜索“growth retardation(生长阻滞)”,获得该性状的相关基因,对相关性评分(relevance score)进行筛选,只选取大于该数据中位数的基因,并与预测得到的黄花蒿有效活性成分靶点取交集。使用STRING数据库(https://string-db.org)基于斑马鱼为模型,设置置信度得分(confidence score)>0.7,构建蛋白质-蛋白质相互作用(PPI)网络,运用Cytoscape 3.10.3软件进行作图。

1.10 代谢组学分析

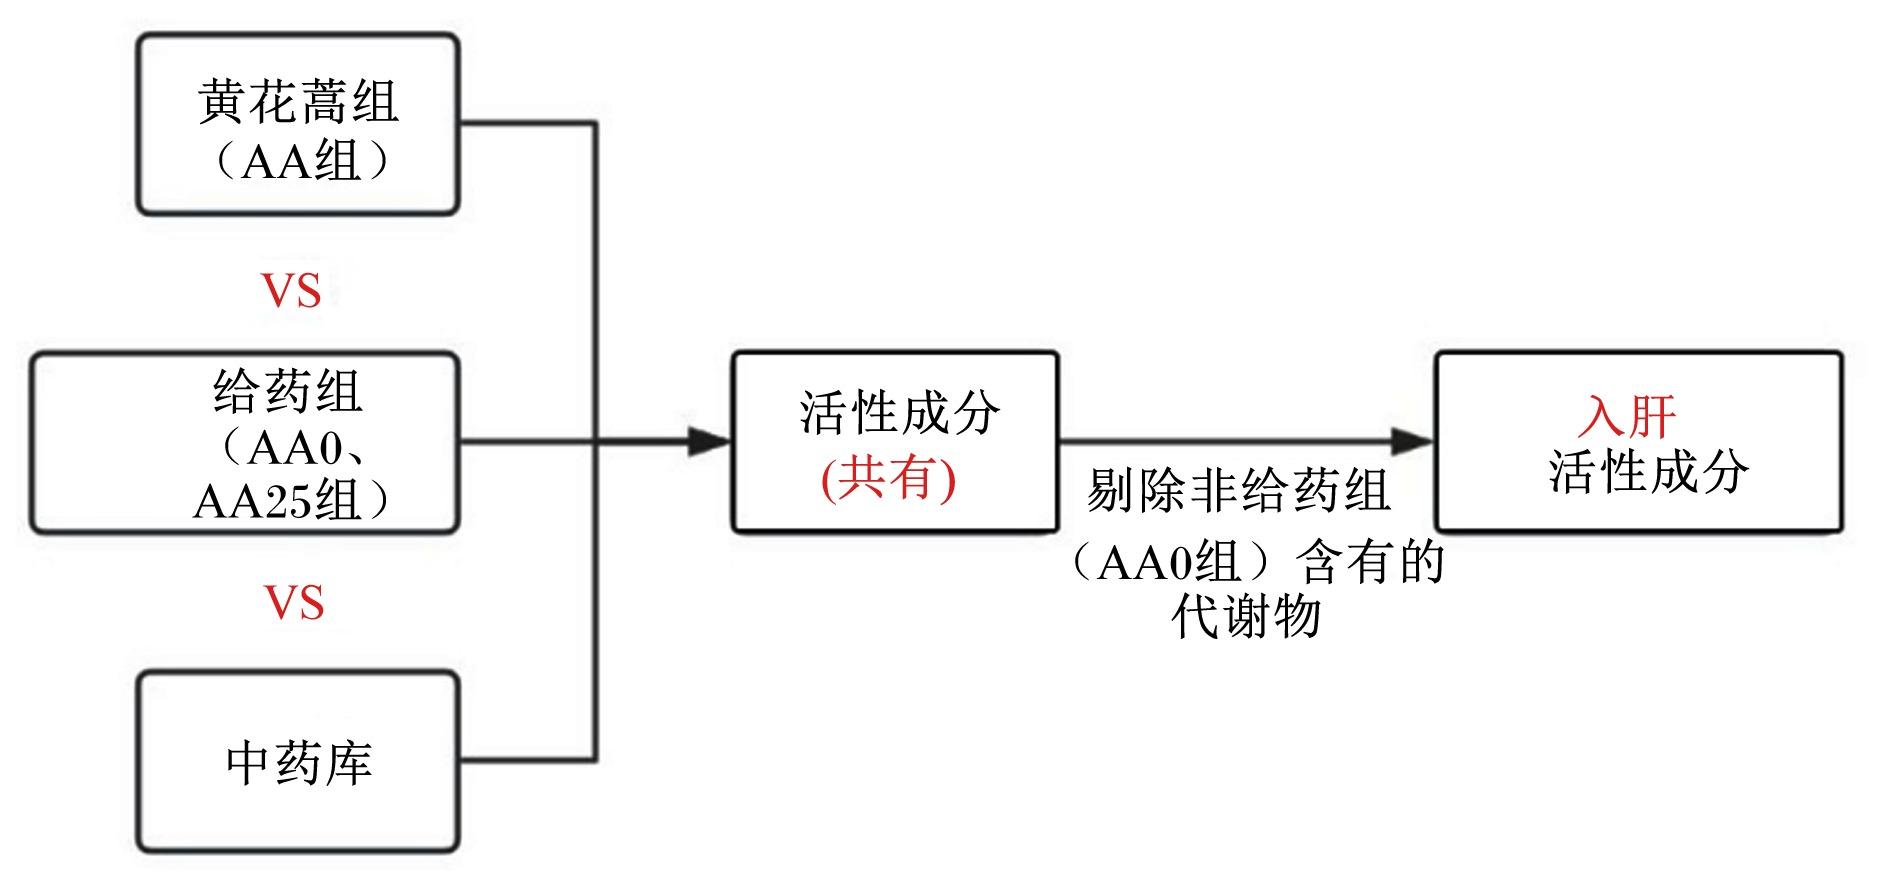
选择对照组(非给药组:AA0组)、中添加组和高添加组(给药组:AA10和AA25组)进行肝脏活性成分代谢组及非靶代谢组分析;此外,对黄花蒿样本(黄花蒿组:AA组)进行活性成分代谢组分析。在OTCML数据库(https://www.otcmarkets.com)进行比对,筛选出黄花蒿的潜在入肝活性成分,具体流程如图1所示。
图1 黄花蒿潜在入肝活性成分筛选流程图

Fig.1 Screening flowchart for potential active components of A. annua into liver

非靶代谢组处理与分析流程:将样本进行研磨(液氮研磨组织样本,黄花蒿样本先进行冷冻干燥后再进行研磨过100目)后,准确称取100 mg样本于EP管中,加入500 μL的80%甲醇水溶液,涡旋振荡,静置5 min后4 ℃离心(15 000×g)20 min,取上清液进行液相色谱-质谱(LC-MS)分析[15]

1.11 数据处理与分析

用SPSS 25.0软件先对试验数据进行正态分布和方差齐性检验,再进行单因素方差分析(one-way ANOVA)及Duncan氏法多重比较。结果采用平均值±标准误(mean±SE)形式表示,以P<0.05表示差异显著。肝脏差异表达代谢物(DEMs)筛选的标准为变量投影重要度(VIP)>1.0,P<0.05且差异倍数(FC)≥2或≤0.5[16]

2 结果与分析

2.1 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡生长和形体指标的影响

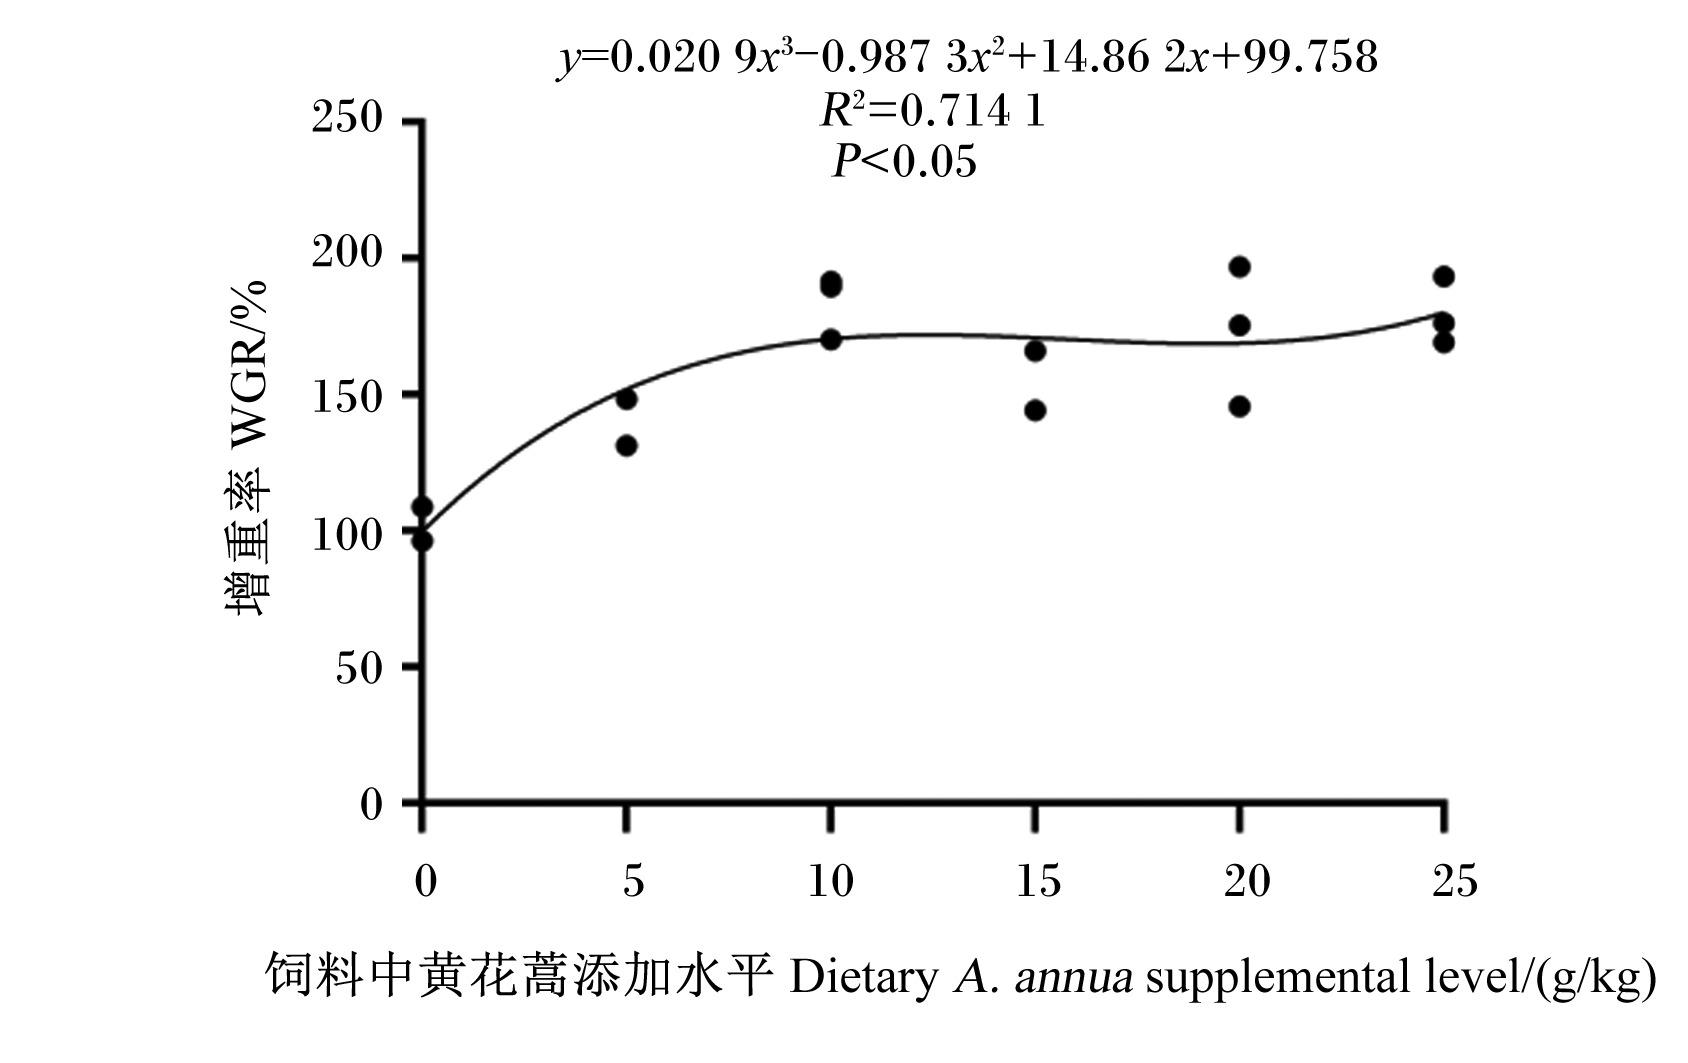
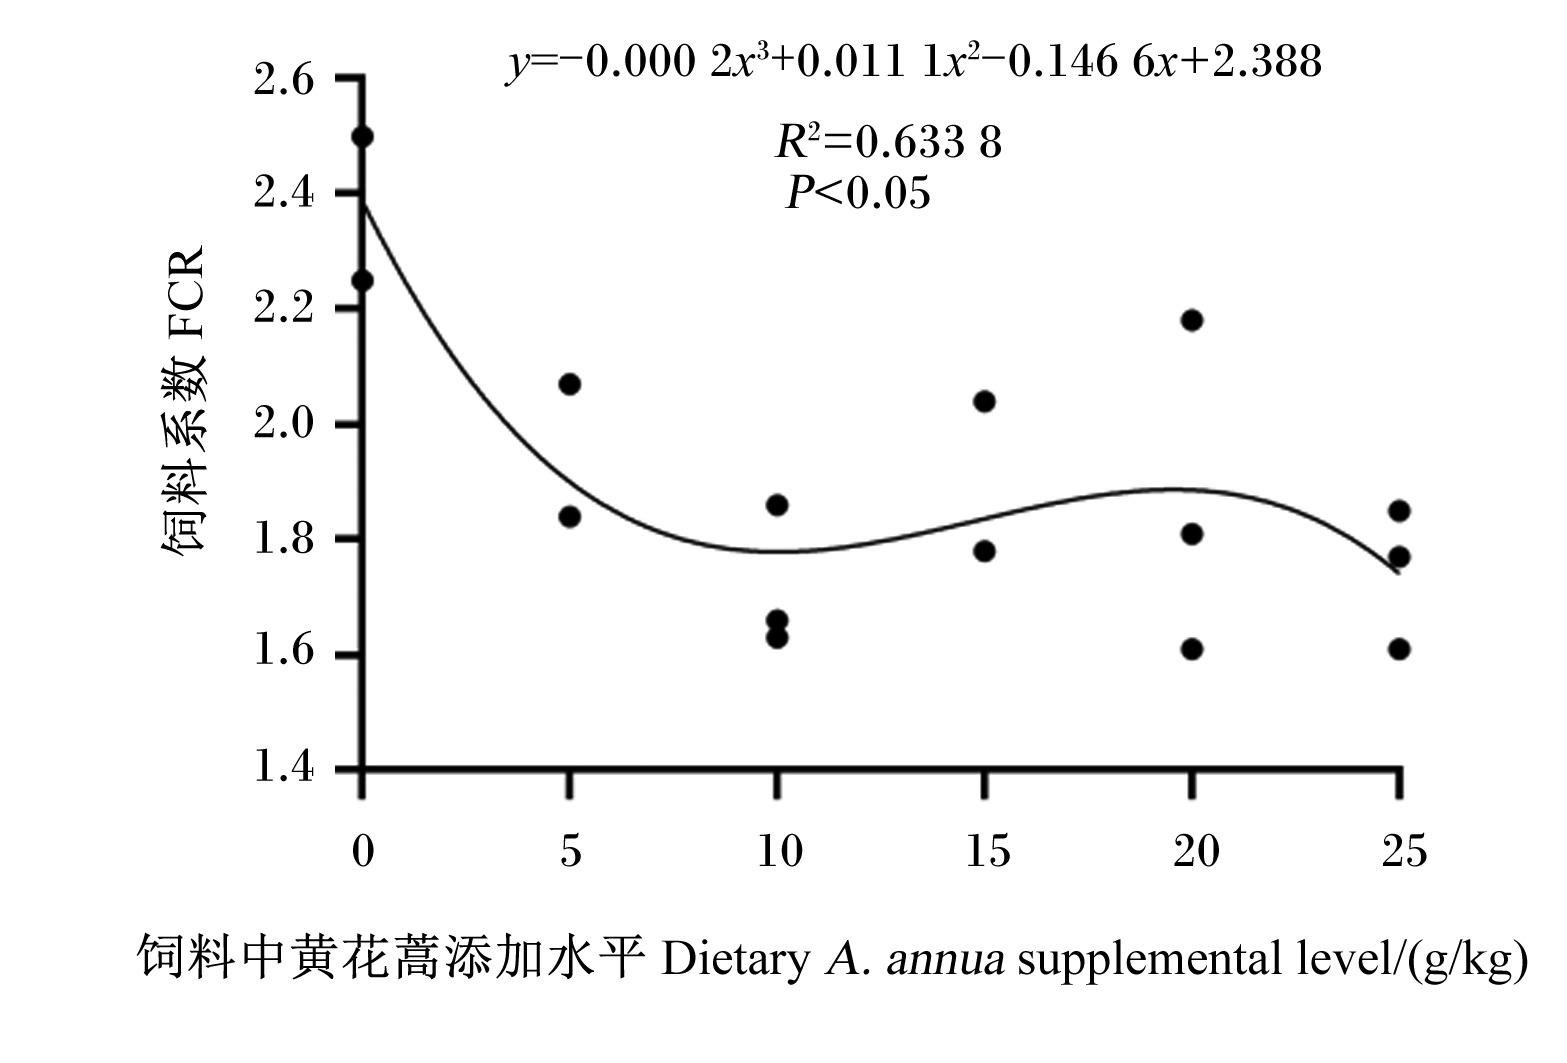
表1可知,各黄花蒿添加组(AA5、AA10、AA15、AA20及AA25组)的摄食量、增重率及特定生长率均显著高于作为对照的AA0组(P<0.05);AA0组的饲料系数显著高于各黄花蒿添加组(P<0.05);终末体重与蛋白质效率均以AA10及AA25组较高,显著高于AA0组(P<0.05);虽然脱僵率各组间无显著差异(P>0.05),但AA10、AA15、AA20及AA25组的脱僵鳗鲡增重率较AA0、AA5组显著升高(P<0.05);AA20组的肥满度显著高于AA5、AA10及AA15组(P<0.05);AA20组的脏体比显著高于AA15组(P<0.05);AA10及AA15组的肝体比显著低于AA0组(P<0.05);AA10组的肠体比显著低于AA20及AA25组(P<0.05)。曲线拟合结果显示,日本鳗鲡的增重率、饲料系数与饲料中黄花蒿添加量存在显著的多次函数关系(图2图3)。
表1 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡生长和形体指标的影响

Table 1 Effects of different supplemental levels of A. annua in diets on growth and morphometric indicators of growth-retarded Japanese eel

项目
Items
组别Groups
AA0 AA5 AA10 AA15 AA20 AA25
初始体重
IBW/g
27.92
±0.12
28.00
±0.00
27.71
±0.12
27.73
±0.15
27.79
±0.05
27.76
±0.06
终末体重
FBW/g
56.48
±1.36b
67.15
±2.39b
78.67
±2.17a
71.14
±2.94ab
75.81
±4.23ab
77.65
±2.09a
摄食量
FI/g
68.94
±0.87c
77.33
±1.13b
89.46
±1.19a
81.91
±2.29b
92.27
±3.97a
90.42
±2.18a
摄食率
FR/(%/d)
1.26
±0.22
1.29
±0.08
1.13
±0.05
1.26
±0.09
1.23
±0.11
1.15
±0.05
成活率
SR/%
98.67
±1.33
98.67
±1.33
97.33
±1.33
98.67
±1.33
96.00
±4.00
96.00
±2.31
增重率
WGR/%
102.62
±6.32c
139.83
±8.54b
183.87
±6.83a
155.19
±10.92ab
172.78
±14.90ab
179.70
±7.14a
特定生长率
SGR/(%/d)
0.90
±0.04c
1.12
±0.05b
1.33
±0.03a
1.20
±0.05ab
1.28
±0.07ab
1.32
±0.03a
饲料系数
FCR
2.38
±0.13a
1.96
±0.12b
1.72
±0.07b
1.91
±0.13b
1.87
±0.17b
1.74
±0.07b
蛋白质效率
PER
3.62
±0.19b
4.39
±0.26ab
5.01
±0.20a
4.50
±0.31ab
4.65
±0.41a
4.92
±0.20a
脱僵率
Stunting reversal rate/%
37.78
±2.22
39.17
±2.46
36.94
±1.95
34.75
±2.75
38.18
±1.82
37.49
±2.09
脱僵鳗鲡增重率
WGR of destunted eels/%
234.89
±16.97c
308.91
±23.39bc
420.89
±28.64a
386.56
±18.93ab
398.33
±36.85ab
405.70
±37.87a
肥满度
CF/(g/cm3)
0.119
±0.002ab
0.114
±0.004b
0.111
±0.004b
0.114
±0.003b
0.126
±0.003a
0.120
±0.003ab
脏体比
VSI/%
4.81
±0.36ab
5.05
±0.29ab
5.02
±0.28ab
4.62
±0.16b
5.51
±0.22a
5.35
±0.19ab
肝体比
HSI/%
1.84
±0.14a
1.73
±0.13ab
1.51
±0.10bc
1.35
±0.07c
1.60
±0.05abc
1.55
±0.06abc
肠体比
ISI/%
30.78
±1.23ab
30.49
±1.49ab
26.80
±1.89b
29.15
±1.39ab
32.30
±1.19a
32.85
±1.37a

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

图2 饲料中黄花蒿添加水平与日本鳗鲡增重率的回归分析

Fig.2 Regression analysis of dietary A. annua supplemental level and WGR of Japanese eel

图3 饲料中黄花蒿添加水平与日本鳗鲡饲料系数的回归分析

Fig.3 Regression analysis of dietary A. annua supplemental level and FCR of Japanese eel

2.2 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡肌肉营养组成的影响

表2可知,饲料中添加不同水平黄花蒿对肌肉水分含量无显著影响(P>0.05);AA10与AA20组肌肉灰分含量较AA0组显著降低(P<0.05);与AA0组相比,AA10和AA20组肌肉蛋白质含量显著降低(P<0.05);除AA10组外,其余黄花蒿添加组肌肉脂肪含量均显著高于AA0组(P<0.05)。
表2 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡肌肉营养组成的影响(湿重基础)

Table 2 Effects of different supplemental levels of A. annua in diets on muscle nutritional composition of growth-retarded Japanese eel (wet weight basis) %

项目
Items
组别Groups
AA0 AA5 AA10 AA15 AA20 AA25
水分Moisture 67.04±0.39 66.22±1.30 66.57±0.88 64.92±0.91 67.45±0.92 64.80±1.06
灰分Ash 1.10±0.01ab 1.14±0.02a 1.04±0.01c 1.11±0.03ab 1.02±0.01c 1.05±0.01bc
蛋白质Protein 17.97±0.38ab 17.78±0.13bc 17.28±0.20c 18.53±0.12a 17.25±0.07c 18.50±0.16a
脂肪Lipid 13.81±0.31c 14.95±0.59ab 14.45±0.71abc 16.39±0.10a 15.90±0.15ab 15.46±0.18ab

2.3 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡消化能力的影响

表3可知,AA20组胃中胃蛋白酶活性显著高于其他各组(P<0.05);各黄花蒿添加组胃中α-淀粉酶及脂肪酶活性较AA0组显著降低(P<0.05);与AA0组相比,适量添加黄花蒿显著提高了前肠中胰蛋白酶(AA15和AA20组)和α-淀粉酶活性(AA5、AA10和AA15组)(P<0.05);除AA25组外,其余黄花蒿添加组前肠中脂肪酶活性较AA0组显著降低(P<0.05)。
表3 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡胃肠道消化酶活性的影响

Table 3 Effects of different supplemental levels of A. annua in diets on gastrointestinal digestive enzyme activities of growth-retarded Japanese eel

项目
Items
组别Groups
AA0 AA5 AA10 AA15 AA20 AA25
胃Stomach
胃蛋白酶
PEP/(U/mg port)
73.96±0.89b 73.70±1.05b 61.10±0.62c 71.18±0.08b 79.60±2.80a 71.38±0.73b
α-淀粉酶
AMS/(U/mg port)
0.18±0.00a 0.15±0.01b 0.10±0.00c 0.13±0.01b 0.13±0.01b 0.15±0.00b
脂肪酶
LPS/(U/g prot)
7.36±0.57a 5.70±0.11b 4.90±0.12bc 4.71±0.12bc 4.29±0.21c 4.80±0.20bc
前肠Foregut
胰蛋白酶
TRS/(U/mg port)
89.38±0.00b 64.25±4.28c 38.80±4.06d 138.35±9.97a 137.07±7.21a 98.93±3.19b
α-淀粉酶
AMS/(U/mg port)
1.29±0.01c 1.53±0.04b 1.83±0.04a 1.78±0.00a 1.35±0.04c 1.10±0.04d
脂肪酶
LPS/(U/g prot)
89.23±1.73a 54.39±0.60c 61.21±0.45b 48.42±2.29d 34.69±0.63e 87.10±0.37a
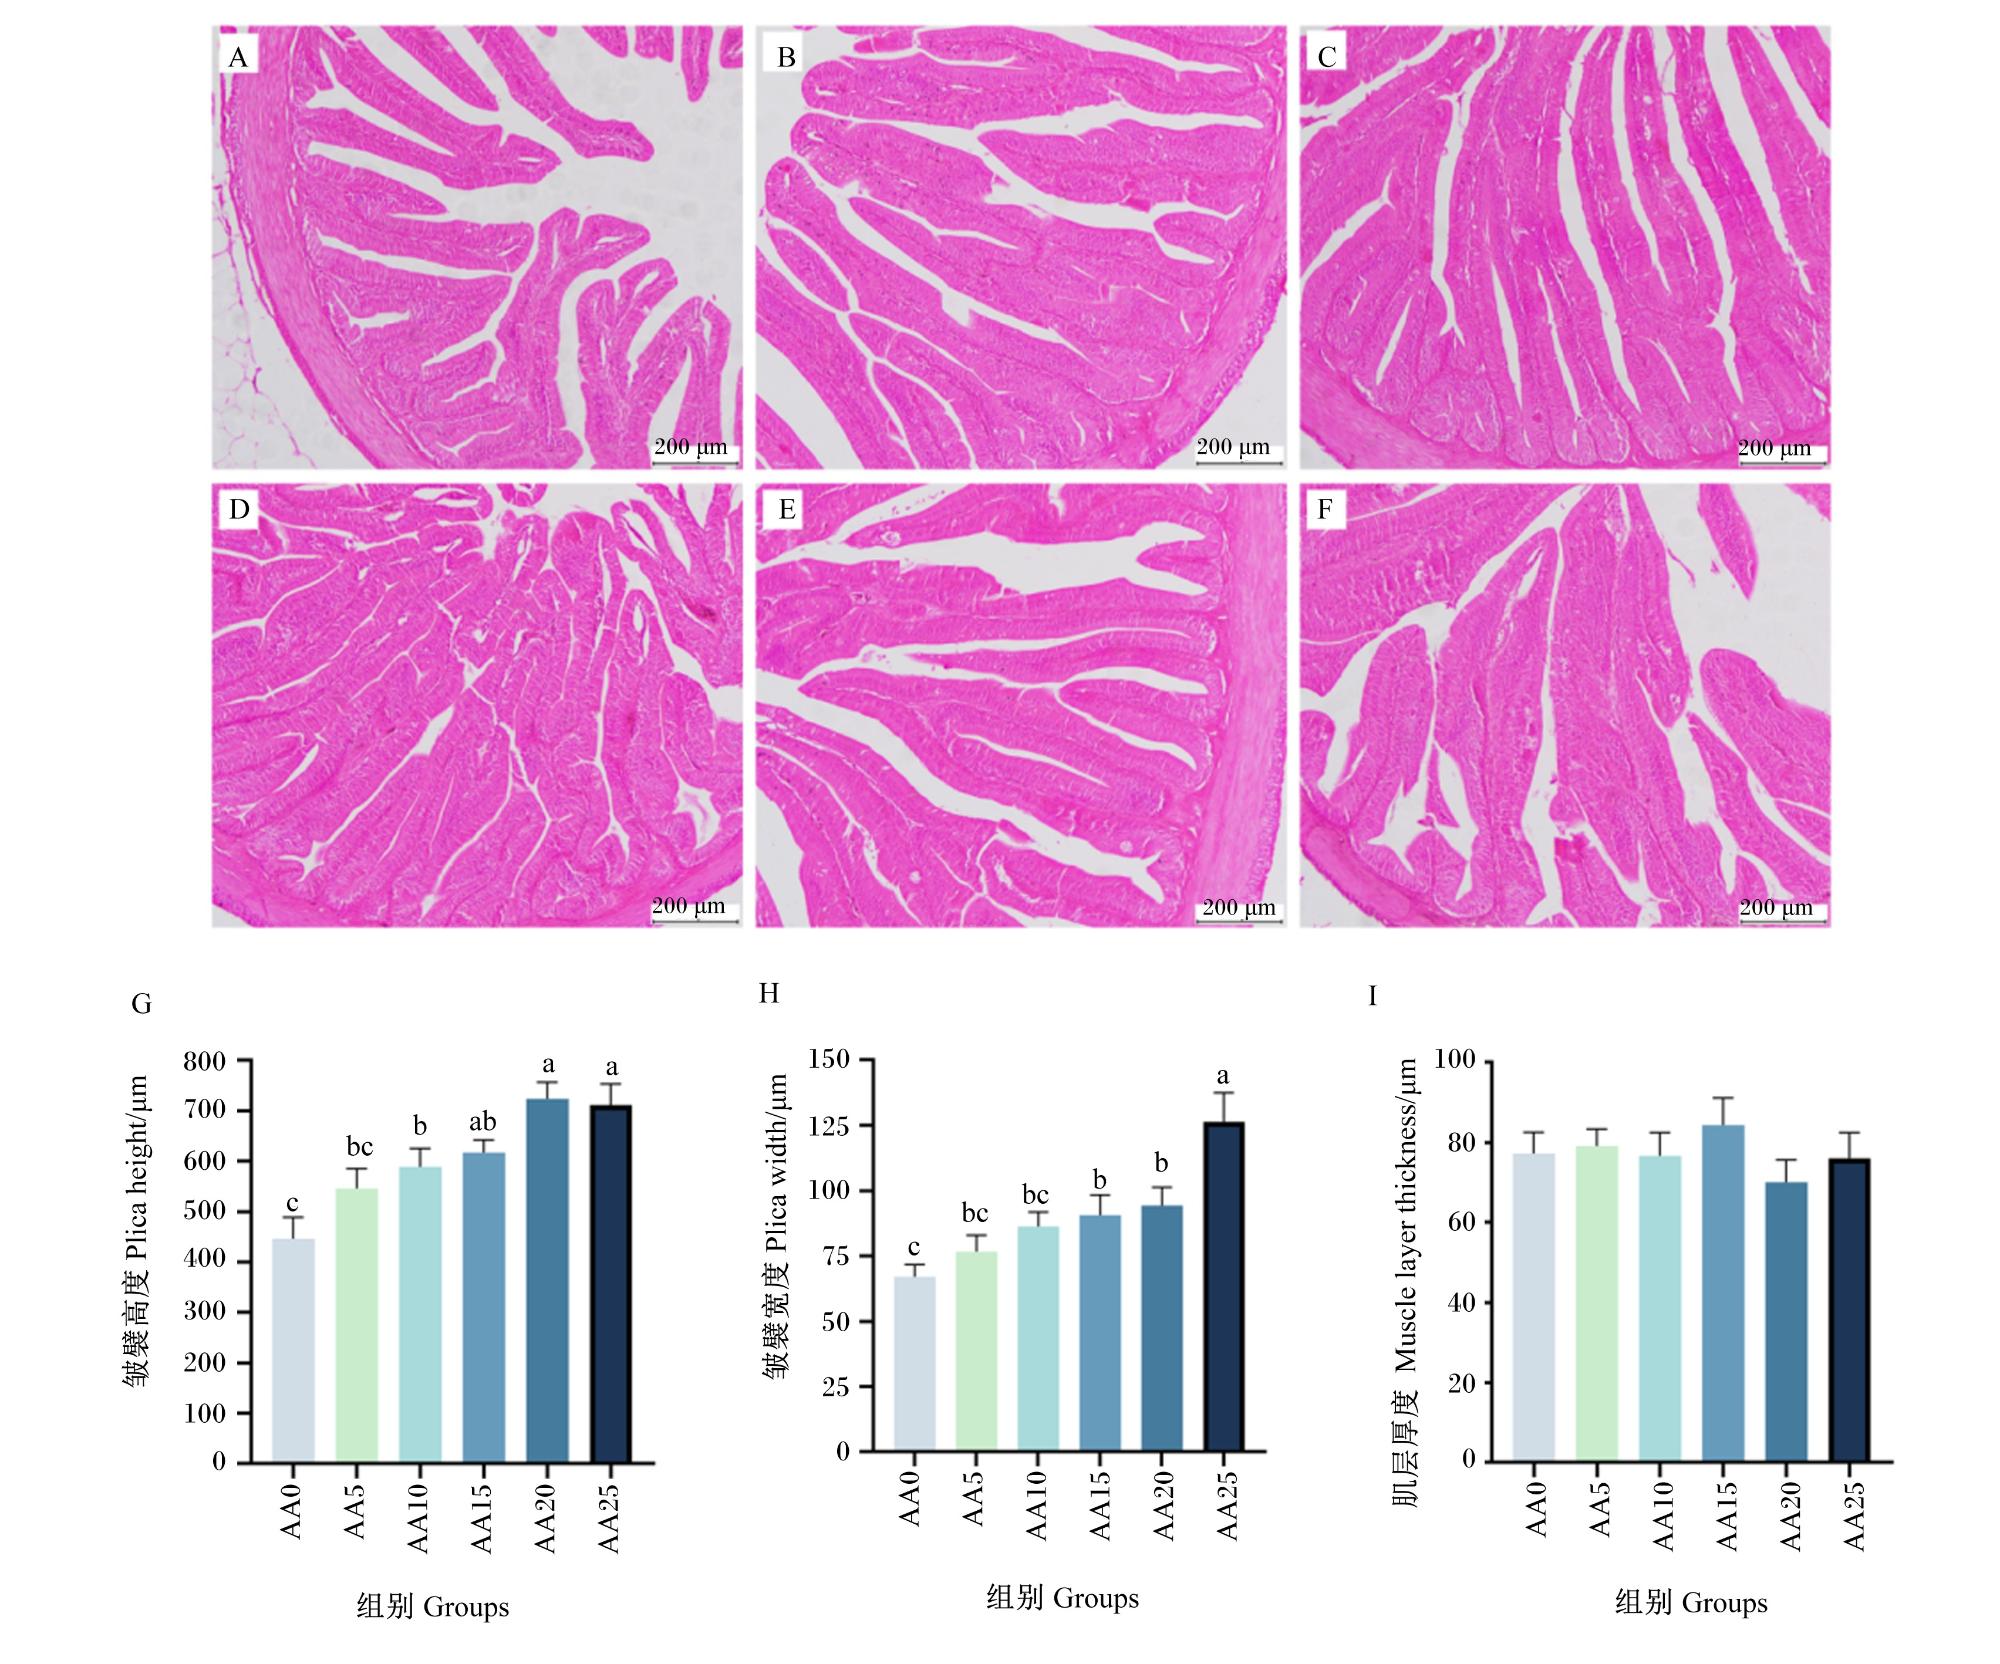
图4所示,各组前肠肌层结构完整,AA10组皱襞排列整齐,AA5、AA10和AA15组肠皱襞排列较为密集,而AA20、AA25组皱襞出现数量减少的现象;AA10、AA15、AA20和AA25组的皱襞高度显著高于AA0组(P<0.05),AA15、AA20和AA25组的皱襞宽度显著高于AA0组(P<0.05),各组间肌层厚度无显著差异(P>0.05)。
图4 饲料中添加不同水平黄花蒿对生长阻滞日本鳗鲡前肠组织形态的影响

A~F:AA0、AA5、AA10、AA15、AA20及AA25组前肠组织切片观察(HE染色,100×),比例尺=200 μm;G:各组前肠皱襞高度比较;H:各组前肠皱襞宽度比较;I:各组前肠肌层厚度比较。数据柱上无字母或有相同字母表示差异不显著(P>0.05),有不同小写字母表示差异显著(P<0.05)。

Fig.4 Effects of different supplemental levels of A. annua in diets on foregut morphology of growth-retarded Japanese eel

A to F: observations of foregut tissue sections from AA0, AA5, AA10, AA15, AA20 and AA25 groups, respectively (HE staining, 100×), scale bar=200 μm; G: comparison of plica height in foregut among groups; H: comparison of plica width in foregut among groups; I: comparison of muscle layer thickness in foregut among groups. Bars without letters or with the same letter indicated no significant difference (P>0.05), whereas with different lowercase letters indicated significant difference (P<0.05).

2.4 黄花蒿-有效活性成分-靶点-生长阻滞分析

利用TCMSP初步获得黄花蒿中的22种有效活性成分,再利用SwissADME进一步筛选,得到17种符合药代动力学要求的化合物,详见表4
表4 黄花蒿中有效活性成分筛选

Table 4 Screening of effective active components in A. annua

分子标识符
Mol ID
英文名称
English name
中文名称
Chinese name
口服生物利用度
OB/%
类药性
DL
MOL002235 Eupatin 泽兰黄醇 50.80 0.41
MOL000354 Isorhamnetin 异鼠李素 49.60 0.31
MOL004083 Tamarixetin 柽柳黄素 32.86 0.31
MOL000422 Kaempferol 山奈酚 41.88 0.24
MOL004609 Areapillin 茵陈黄酮 48.96 0.41
MOL005229 Artemetin 青蒿黄素 49.55 0.48
MOL000006 Luteolin 木犀草素 36.16 0.25
MOL007274 Skrofulein 玄参黄酮 30.35 0.30
MOL007389 Artemisitene 青蒿烯 54.36 0.31
MOL007401 Cirsiliol 甲酚 43.46 0.34
MOL007404 Vitexin 牡荆素 52.18 0.21
MOL007412 Axillarin 甲氧基万寿菊素 42.60 0.37
MOL007415 Aurantiamide acetate 金色酰胺醇酯 58.02 0.52
MOL007424 Artemisinin 青蒿素 49.88 0.31
MOL007425 Dihydroartemisinin 双氢青蒿素 50.75 0.30
MOL007426 Deoxyartemisinin 脱氧青蒿素 54.47 0.26
MOL000098 Quercetin 槲皮素 46.43 0.28
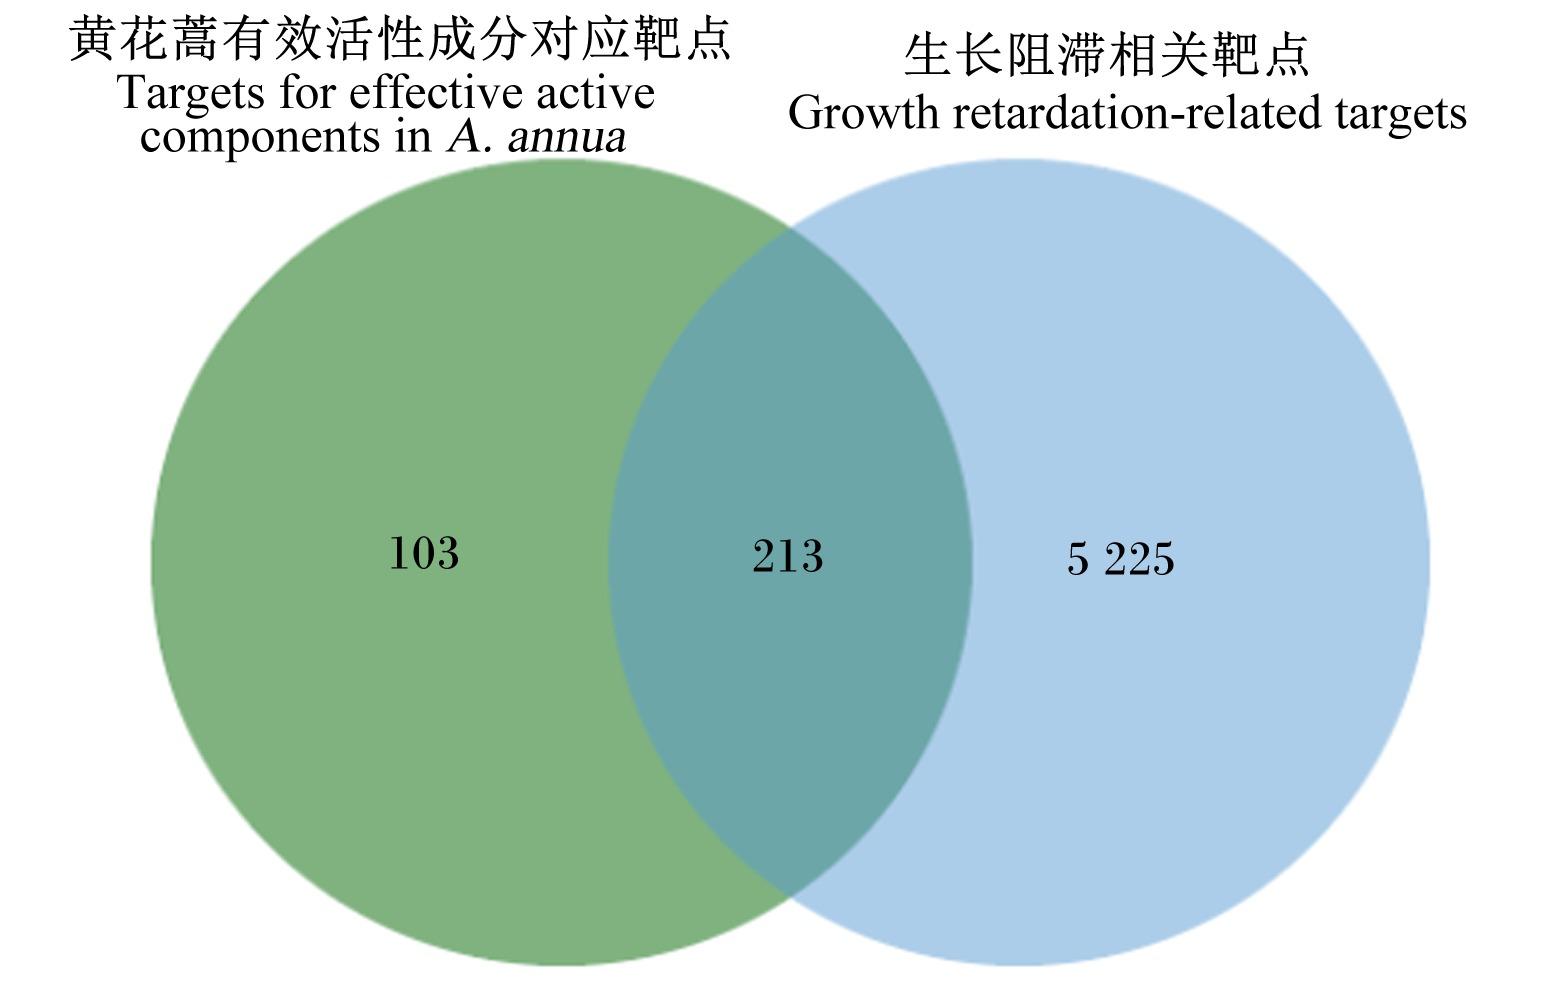
将黄花蒿有效活性成分对应靶点与GeneCards数据库中得到的生长阻滞相关靶点进行分析,共筛选得到213个交集靶点(图5)。
图5 黄花蒿有效活性成分对应靶点与生长阻滞相关靶点的Venn图

Fig.5 Venn diagram of targets for effective active components in A. annua and growth retardation-related targets

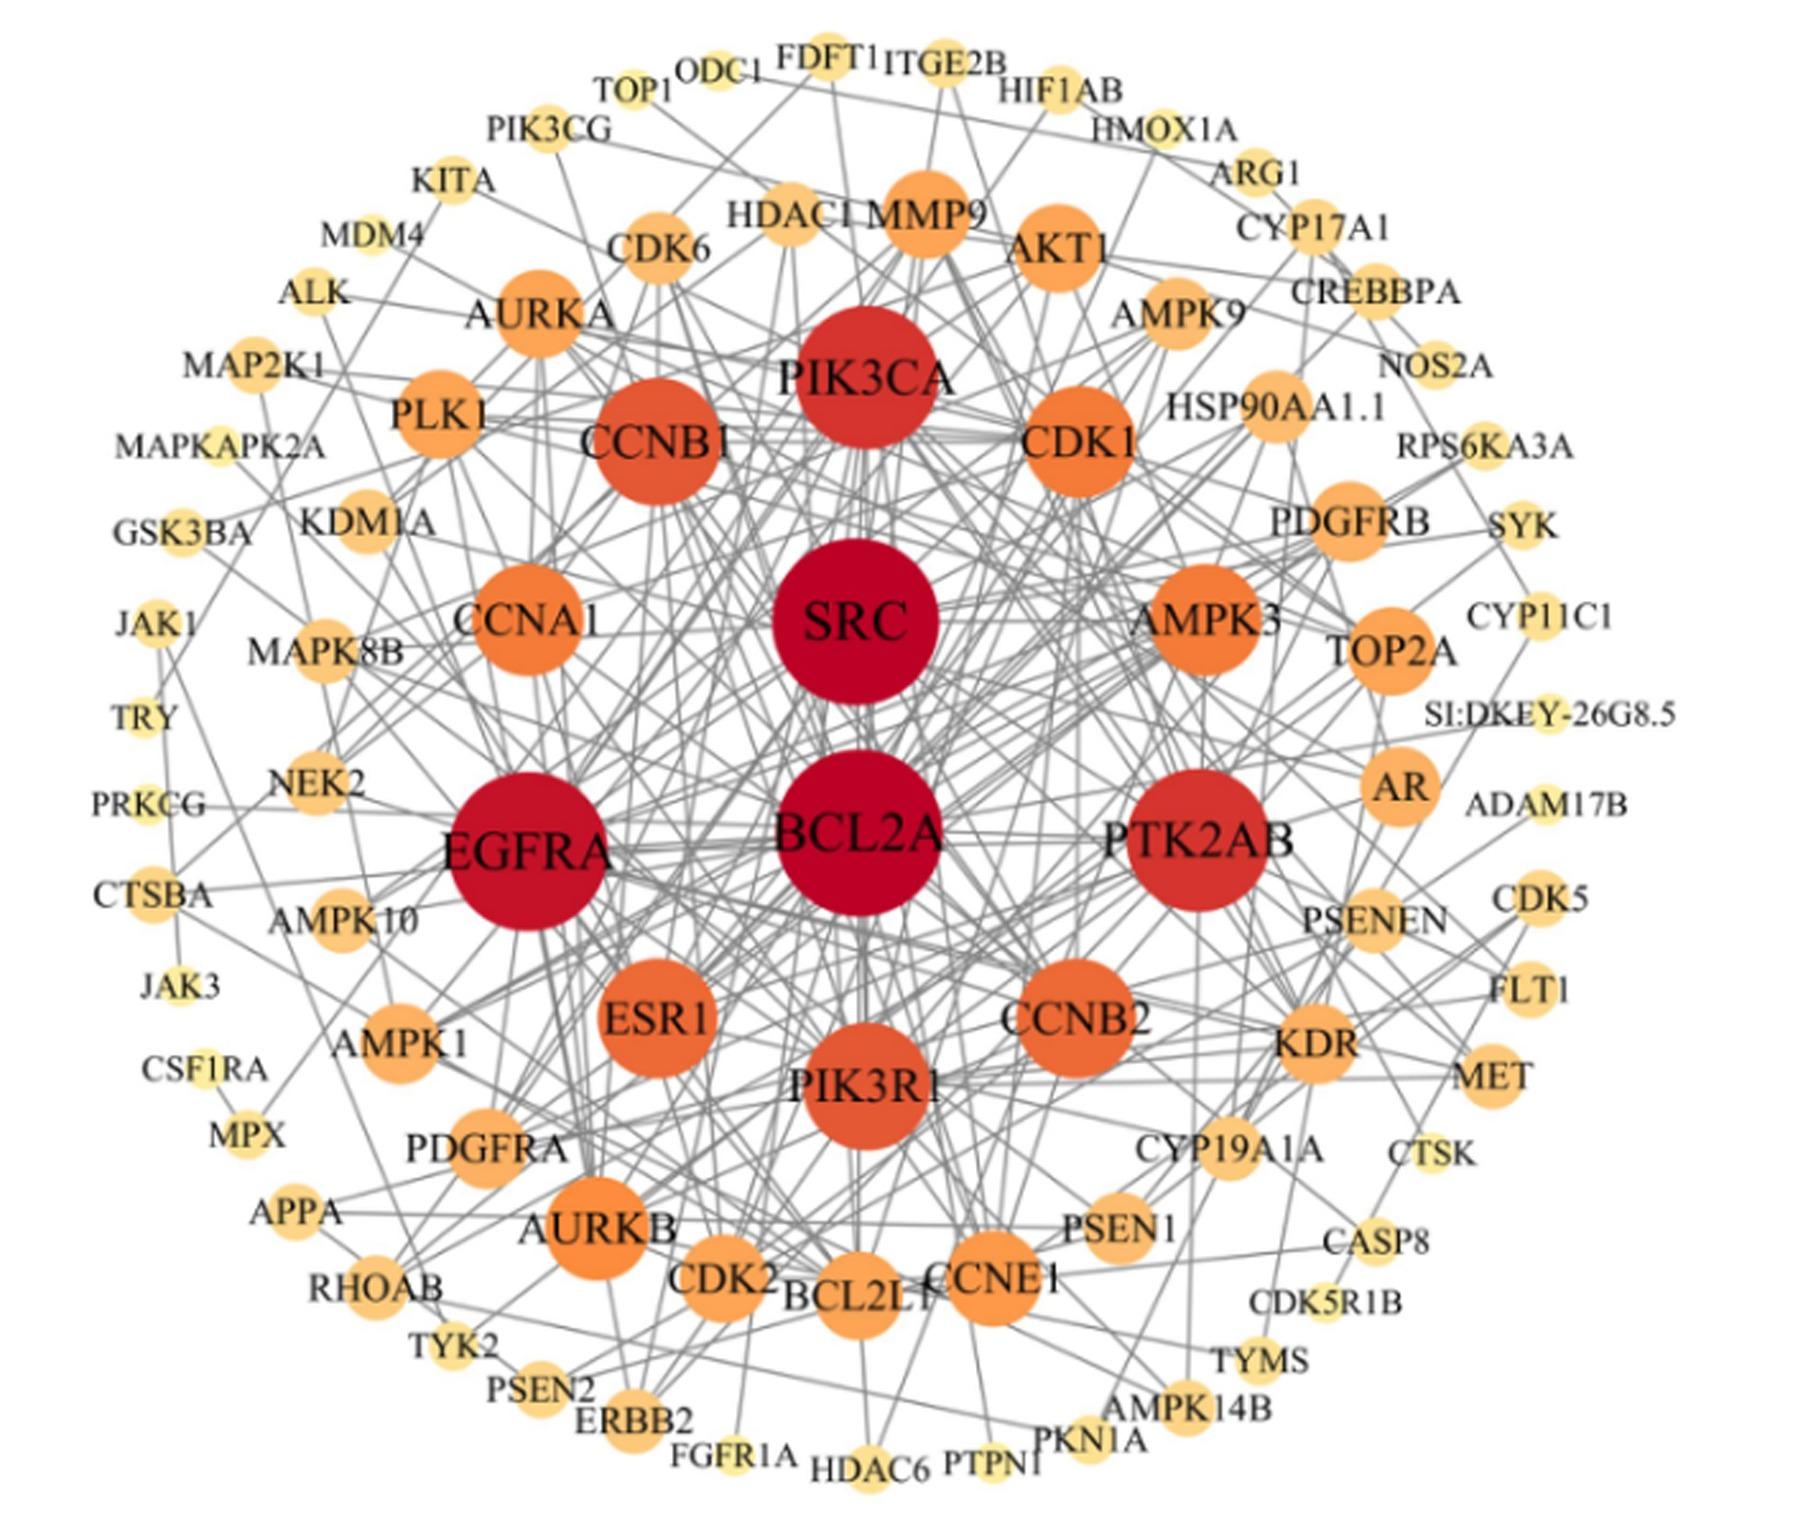
黄花蒿有效活性成分与生长阻滞交集靶点的PPI网络图如图6所示,图中有183个节点和223个边缘,前6个核心靶点为B细胞淋巴瘤2相关蛋白A(BCL2A)、Src酪氨酸激酶(SRC)、表皮生长因子受体A(EGFRA)、蛋白酪氨酸激酶2ab(PTK2AB)、磷脂酰肌醇3-激酶催化亚基α(PIK3CA)、磷脂酰肌醇3-激酶调节亚基1(PIK3R1)。
图6 蛋白质-蛋白质相互作用网络图

根据度值设置节点大小和颜色深浅,度值与节点直径、颜色深度成正比,节点之间连线表示节点间相互作用,连线越多,说明两者间关系越紧密,互作的可能性越大。

Fig.6 PPI network diagram

According to the degree value, the node size and color depth are set. The degree value is proportional to the node diameter and color depth. The connection between nodes indicates the interaction between nodes. The more connections, the closer the relationship between the two, the greater the possibility of interaction.

2.5 黄花蒿入肝活性成分筛选

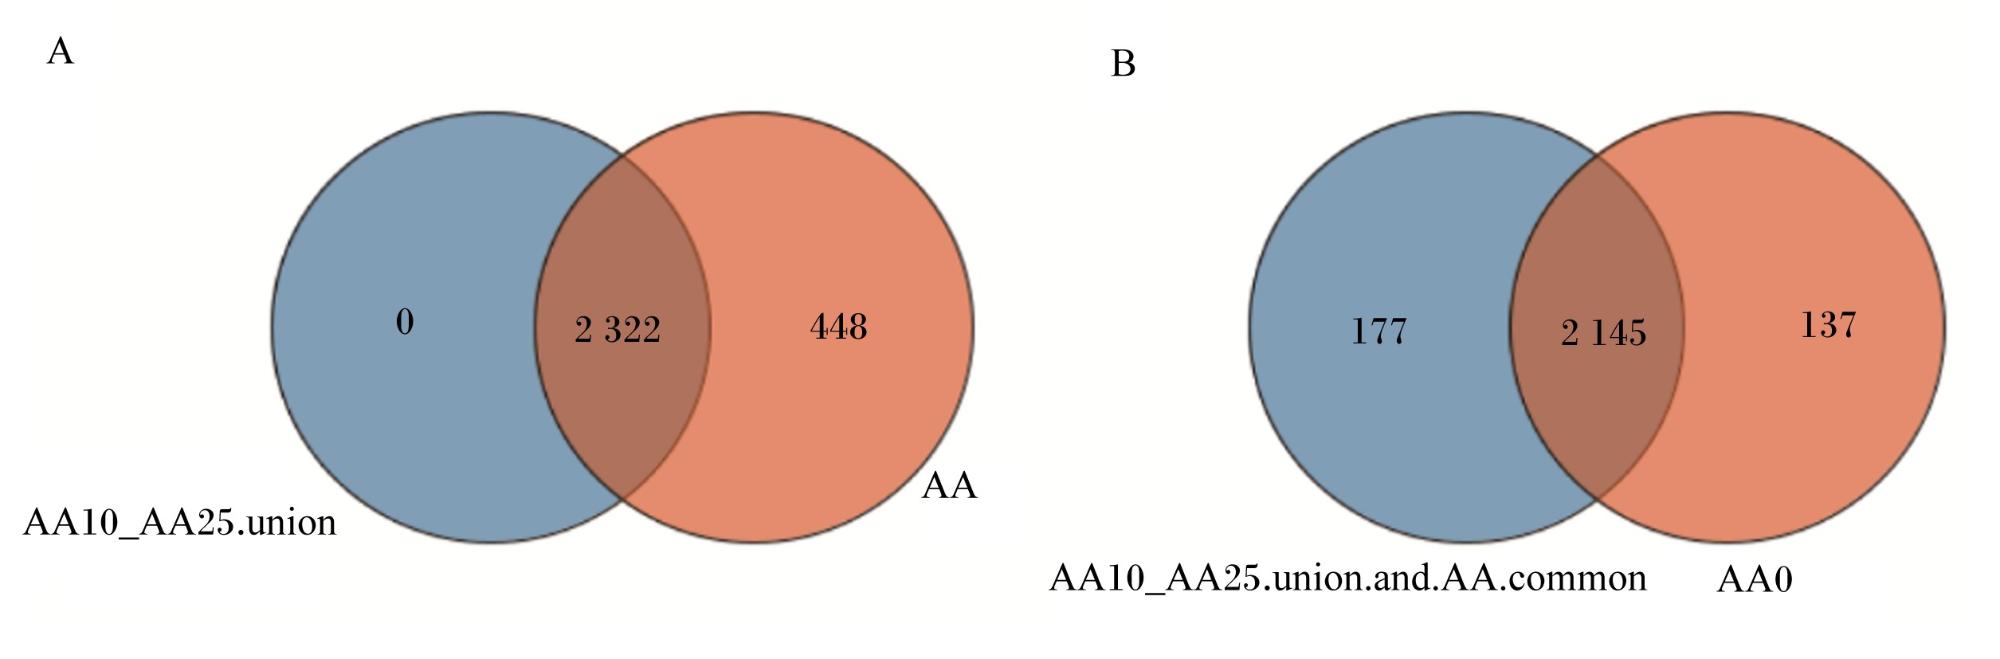
在黄花蒿中共检测出2 770种活性成分,涵盖萜类、生物碱类、多酚类、皂苷类及香豆素类等多种化合物类型。通过比较给药组(AA10和AA25组)与黄花蒿组(AA组)的活性成分,发现共有活性成分为2 322种(图7-A);将这2 322种共有活性成分与非给药组(AA0组)的活性成分进行比较,最后得到177种黄花蒿潜在入肝活性成分(图7-B),主要包括黄酮类[如飞龙掌血黄酮C(flemiphilippinin C)]、多酚类[如2-O-福洛依克酚(2-O-phloroeckol)]、生物碱类[如胡蔓藤碱(humantenine)、尼尔吉里碱(nilgirine)]及皂苷类[如柴胡皂苷A(saikosaponin A)、人参皂苷Rs1(ginsenoside Rs1)]等。
图7 黄花蒿潜在入肝活性成分Venn图

AA10_AA25.union:AA10和AA25组的并集 the union of AA10 and AA25 groups;AA:AA组 AA group;AA10_AA25.unionand.AA.common:AA10和AA25组的并集与AA组共有的部分the common part between the union of AA10 and AA25 groups and the AA group;AA0:AA0组 AA0 group。

Fig.7 Venn diagram for screening of potential hepatic active ingredients in A. annua

2.6 差异表达代谢物和代谢途径分析

2.6.1 肝脏中中药成分相关差异表达代谢物分析
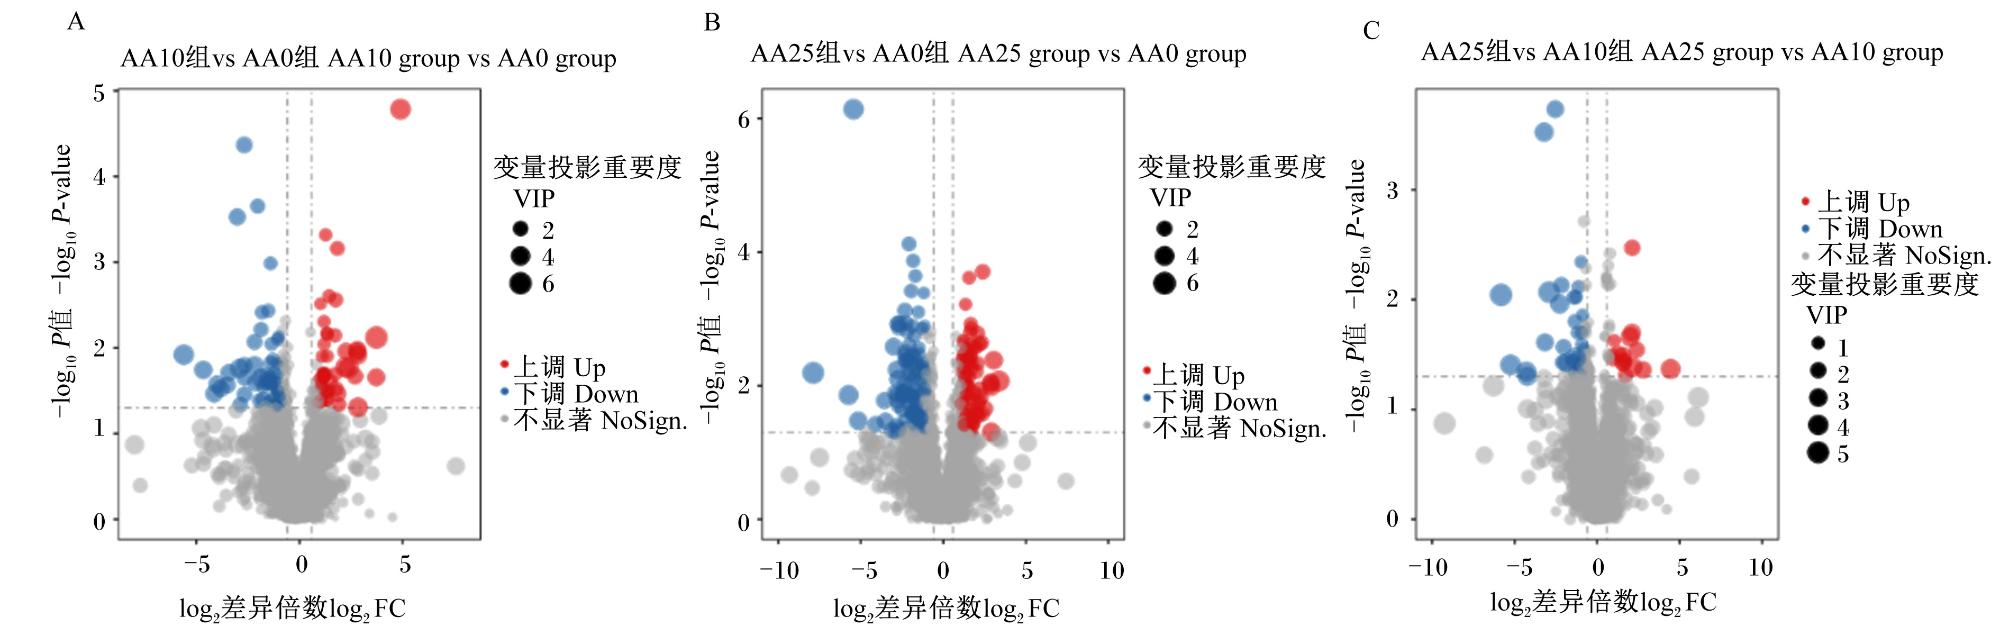
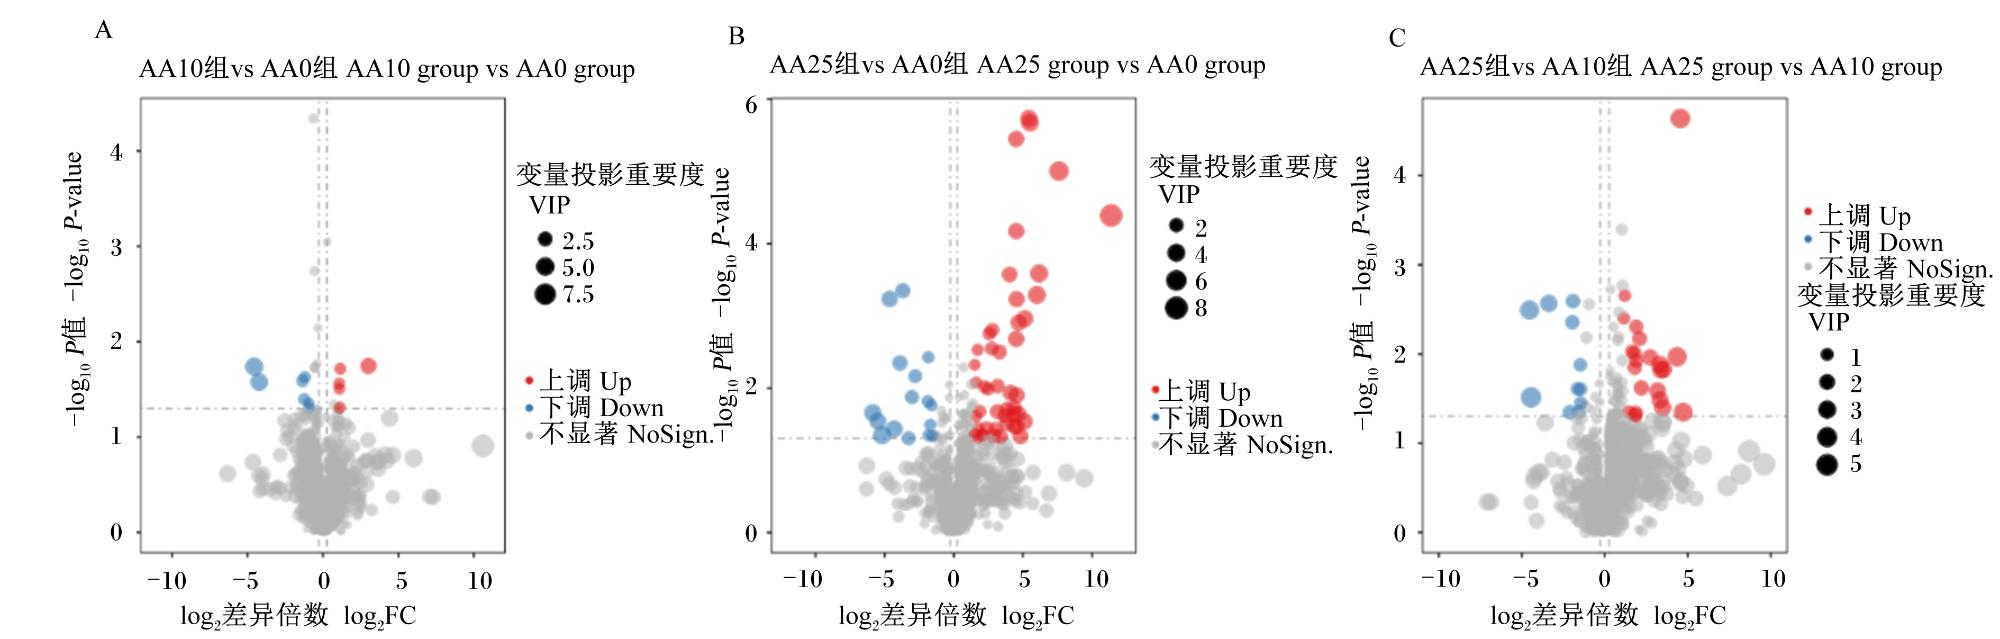
对肝脏进行非靶代谢组分析,共鉴定出2 426个中药成分相关代谢物,各组间比较结果见图8表5。以AA0组为对照,在AA10组共鉴定出109个差异表达代谢物,其中52个上调(刺五加皂苷Ⅺ、地芰萘苷、马尾松苷C等),57个下调[1(10)-二烯-2-酮-30-酸、7-O-甲基莫罗忍冬苷等];以AA0组为对照时,在AA25组共鉴定出187个差异表达代谢物,包括84个上调的差异表达代谢物(刺五加皂苷Ⅺ、环戊并[c]吡喃-4-羧酸、巴他汀Ⅰ等)和103个下调的差异表达代谢物[普利司替宁、1-甲基-2-[(Z)-7-十三碳烯基]-4(1H)-喹诺酮、地钱素E等];而以AA10组为对照时,在AA25组共鉴定出49个差异表达代谢物,其中16个上调(乙酰胆碱、α-常山碱、耳形苷等),33个下调[(2E,4E,8Z,11E)-2-羟基-N-异丁基-2,4,8,11-十四碳四烯酰胺、艾吉内酯、田麦角碱等]。以AA0组为对照,AA10与AA25组均有47个差异表达代谢物被检测到,其中20个上调,27个下调,AA10与AA25组共有的部分差异表达代谢物见表6
图8 中药成分相关差异表达代谢物火山图

火山图中的每个点代表1个代谢物,显著上调的代谢物用红色点表示,显著下调的代谢物用蓝色点表示,非差异表达代谢物用灰色表示,圆点大小的代表VIP值。图9同。

Fig.8 Volcano plots of Chinese medicine component-related DEMs

Each point in the volcano plot represents a metabolite. The significantly up-regulated metabolites are represented by red dots, and the significantly down-regulated metabolites are represented by blue dots. The non-differentially expressed metabolites are represented by gray, and the size of the dots represents the VIP value. The same as Fig.9.

表5 部分中药成分相关差异表达代谢物及其表达趋势

Table 5 Some Chinese medicine component-related DEMs and their expression trends

差异表达代谢物
DEMs
表达趋势
Expression trends
AA10组vs AA0组AA10 group vs AA0 group
刺五加皂苷Ⅺ Eclalbasaponin Ⅺ 上调
24-亚甲基环木菠萝烷酮24-methylene cycloartanone 下调
地芰萘苷Diginatin 上调
马尾松苷C Massonianoside C 上调
环戊并[c]吡喃-4-羧酸Cyclopenta[c]pyran-4-carboxylic acid 上调
3-羟基-25-降木栓-3,1(10)-二烯-2-酮-30-酸
3-hydroxy-25-norfriedel-3,1(10)-dien-2-one-30-oic acid
下调
7-O-甲基莫罗忍冬苷7-O-methyl morroniside 下调
21-表泽兰三醇21-episerratriol 下调
扁蓄苷Avicularin 下调
磷脂酰胆碱16 Phosphatidylcholine 16 上调
AA25组vs AA0组AA25 group vs AA0 group
普利司替宁Pristimerin 下调
刺五加皂苷Ⅺ Eclalbasaponin Ⅺ 上调
1-甲基-2-[(Z)-7-十三碳烯基]-4(1H)-喹诺酮
1-methyl-2-[(Z)-7-tridecenyl]-4-(1H)-quinolone
下调
环戊并[c]吡喃-4-羧酸Cyclopenta[c]pyran-4-carboxylic acid 上调
巴他汀Ⅰ Batatasin Ⅰ 上调
地钱素E Marchantin E 下调
9-羟基光甘草内酯9-hydroxyglabratolide 下调
3,4-二咖啡酰基-5-(3-羟基-3-甲基)戊二酰奎宁酸
3,4-dicaffeoyl-5-(3-hydroxy-3-methyl) glutaroyl quinic acid
下调
磷脂酰胆碱16 Phosphatidylcholine 16 上调
新布多苷Neobudofficide 上调
AA25组vs AA10组AA25 group vs AA10 group
乙酰胆碱Acetylcholine 上调
(2E,4E,8Z,11E)-2-羟基-N-异丁基-2,4,8,11-十四碳四烯酰胺
(2E,4E,8Z,11E)-2-hydroxy-N-isobutyl-2,4,8,11-tetradecatetraenamide
下调
艾吉内酯Aeginetolide 下调
田麦角碱Agroclavine 下调
芦荟树脂素C Aloeresin C 下调
α-常山碱α-dichroine 上调
穿心莲定D Andrographidine D 下调
耳形苷Auriculoside 上调
咖啡醇Caffeyl alcohol 上调
环原黄杨星C Cycloprotobuxine C 上调
表6 AA10与AA25组共有的部分中药成分相关差异表达代谢物(AA10、AA25组vs AA0组)

Table 6 Some Chinese medicine component-related DEMs shared by AA10 and AA25 groups (AA10, AA25 groups vs AA0 group)

差异表达代谢物
DEMs
表达趋势
Expression trends
差异表达代谢物
DEMs
表达趋势
Expression trends
α-常山碱α-dichroine 上调 刺苞菊内酯Acanthospermolide 下调
脑苷脂5 Cerebroside 5 上调 顶生酮Acrovestone 下调
可待因Codeine 上调 苦楝内酯Amarolide 下调
刺五加皂苷Ⅺ Eclalbasaponin Ⅺ 上调 (E)-2-壬烯醛(E)-2-nonenal 下调
格罗宁素B Gerronemin B 上调 α-枸橼乌素Citraurin α 下调
戊炔二酸Glutinic acid 上调 地舍平Deserpidine 下调
异长春花碱Isoleurosine 上调 麻黄定B Ephedradine B 下调
苦荬菜苷Ixerisoside 上调 贝母素A Fritillebinide A 下调
柯九里香碱Koenigicine 上调 异三叶木防己碱Isotrilobine 下调
乌檀宁Naucleonine 上调 马缨丹烯A Lantadene A 下调
新布多苷Neobudofficide 上调 千屈菜碱Ⅲ Lythrancepine Ⅲ 下调

2.6.2 肝脏中内源性差异表达代谢物分析

对AA0、AA10和AA25组的肝脏进行非靶代谢组分析,共鉴定到1 133个内源性代谢物,各组间比较结果见图9表7。以AA0组为对照,在AA10组共鉴定到12个差异表达代谢物,其中5个上调[2-(6-羟基己基)-3-亚甲基丁二酸、(1E)-1,7-双(4-羟基苯基)庚-1-烯-3-酮、D-赤藓抗坏血酸1-α-D-吡喃木糖苷等],7个下调[吩嗪-2-羧酸、阿奇霉素、[硫代]N-(3α-羟基-5β-胆烷-24-酰基)-牛磺酸等];以AA0组为对照时,在AA25组共鉴定到63个差异表达代谢物,包含47个上调的差异表达代谢物[加巴枯林、2-羟基-2-甲基丁酸、8-((6-乙基-4-羟基-5-甲基-2-氧代-2H-吡喃-3-基)甲基)-5,7-二羟基-2-苯基色原烷-4-酮等]和16个下调的差异表达代谢物[溶血磷脂酰胆碱(20∶5)、阿奇霉素、磷脂酰胆碱等];而以AA10组为对照时,在AA25组共鉴定到33个差异表达代谢物,其中22个上调[4-氨基-1-(9-羟基-2,2,4,4-四异丙基四氢-6H-呋喃并[3,2-f][1,3,5,2,4]三氧二硅辛因-8-基)-2(1H)-嘧啶酮、N1-(2-氯-6-氟苄基)-3,4-二甲氧基苯-1-磺酰胺、3,5-二硝基水杨酸等],11个下调[磷脂酰胆碱、磷脂酰乙醇胺(22∶0/20∶3(8Z,11Z,14Z)-二羟基(5,6))、溶血磷脂酰甘油等]。以AA0组为对照,AA10与AA25组共同筛选出4个差异表达代谢物,其中2个上调,3个下调(表8)。
图9 内源性差异表达代谢物火山图

Fig.9 Volcano plots of endogenous DEMs

表7 部分肝脏内源性差异表达代谢物及其表达趋势

Table 7 Some endogenous DEMs and their expression trends

差异表达代谢物
DEMs
表达趋势
Expression trends
AA10组vs AA0组AA10 group vs AA0 group
吩嗪-2-羧酸Phenazine-2-carboxylic acid 下调
阿奇霉素Azithromycin 下调
2-(6-羟基己基)-3-亚甲基丁二酸
2-(6-hydroxyhexyl)-3-methylenesuccinic acid
上调
[硫代]N-(3α-羟基-5β-胆烷-24-酰基)-牛磺酸
[Sthydrox]N-(3α-hydroxy-5β-cholan-24-oyl)-taurine
下调
亚甲基二膦酸Methylenediphosphonic acid 下调
替来他明Tiletamine 下调
(1E)-1,7-双(4-羟基苯基)庚-1-烯-3-酮
(1E)-1,7-bis(4-hydroxyphenyl)hept-1-en-3-one
上调
D-赤藓抗坏血酸1-α-D-吡喃木糖苷
D-erythroascorbic acid 1-α-D-xylopyranoside
上调
酸模苷Rumexoside 上调
2-{2-[(19-乙酰氨基-16,18-二羟基-5,9-二甲基-6-氧代二十烷-7-基)
氧]-2-氧代乙基}丁二酸
2-{2-[(19-acetamido-16,18-dihydroxy-5,9-dimethyl-
6-oxoicosan-7-yl)oxy]-2-oxoethyl}butanedioic acid
上调
AA25组vs AA0组AA25 group vs AA0 group
溶血磷脂酰胆碱(20∶5) LPC (20∶5) 下调
加巴枯林Gabaculine 上调
2-羟基-2-甲基丁酸2-hydroxy-2-methylbutanoic acid 上调
阿奇霉素Azithromycin 下调
磷脂酰胆碱(18∶1_22∶6) PC(18∶1_22∶6) 下调
8-((6-乙基-4-羟基-5-甲基-2-氧代-2H-吡喃-3-基)甲基)-
5,7-二羟基-2-苯基色原烷-4-酮
8-((6-ethyl-4-hydroxy-5-methyl-2-oxo-2H-pyran-3-yl)methyl)-
5,7-dihydroxy-2-phenylchroman-4-one
上调
吩嗪-2-羧酸Phenazine-2-carboxylic acid 下调
(2E)-2,3,4,5,5,5-六氟-4-(三氟甲基)-2-戊烯酸
(2E)-2,3,4,5,5,5-hexafluoro-4-(trifluoromethyl)-2-pentenoic acid
上调
磷脂酰乙醇胺(22∶0/20∶3(8Z,11Z,14Z)-二羟基(5,6))
PE(22∶0/20∶3(8Z,11Z,14Z)-2OH(5,6))
下调
[羟基脂肪酸(18∶0)]12,13-二羟基-9Z-十八碳烯酸
[FAhydroxy(18∶0)]12,13-dihydroxy-9Z-octadecenoicacid
上调
AA25组vs AA10组AA25 group vs AA10 group
磷脂酰胆碱(18∶1_22∶6) PC (18∶1_22∶6) 下调
4-氨基-1-(9-羟基-2,2,4,4-四异丙基四氢-6H-呋喃并
[3,2-f][1,3,5,2,4]三氧二硅辛因-8-基)-2(1H)-嘧啶酮
4-amino-1-(9-hydroxy-2,2,4,4-
tetraisopropyltetrahydro-6H-furo[3,2-f][1,3,5,2,4]trioxadisilocin-8-yl)-2(1H)-pyrimidinone
上调
磷脂酰乙醇胺(22∶0/20∶3(8Z,11Z,14Z)-二羟基(5,6))
PE(22∶0/20∶3(8Z,11Z,14Z)-2OH(5,6))
下调
N1-(2-氯-6-氟苄基)-3,4-二甲氧基苯-1-磺酰胺
N1-(2-chloro-6-fluorobenzyl)-3,4-dimethoxybenzene-1-sulfonamide
上调
3,5-二硝基水杨酸3,5-dinitrosalicylic acid 上调
溶血磷脂酰甘油LPG 16∶1 下调
壬烷-4,6-二酮Nonane-4,6-dione 上调
(1E)-1,7-双(4-羟基苯基)庚-1-烯-3-酮
(1E)-1,7-bis(4-hydroxyphenyl)hept-1-en-3-one
上调
9(Z),11(E),13(E)-十八碳三烯酸甲酯
9(Z),11(E),13(E)-octadecatrienoic acid methyl ester
下调
酸模苷Rumexoside 下调
表8 AA10与AA25组共有的内源性差异表达代谢物(AA10、AA25组vs AA0组)

Table 8 Endogenous DEMs shared by AA10 and AA25 groups (AA10, AA25 groups vs AA0 group)

差异表达代谢物
DEMs
表达趋势
Expression trends
差异表达代谢物
DEMs
表达趋势
Expression trends
(1E)-1,7-双(4-羟基苯基)庚-
1-烯-3-酮
(1E)-1,7-bis(4-hydroxyphenyl)
hept-1-en-3-one
上调 吩嗪-2-羧酸
Phenazine-2-carboxylic acid
下调
2-(6-羟基己基)-3-亚甲基丁二酸
2-(6-hydroxyhexyl)-3-
methylenesuccinic acid
上调 阿奇霉素Azithromycin 下调
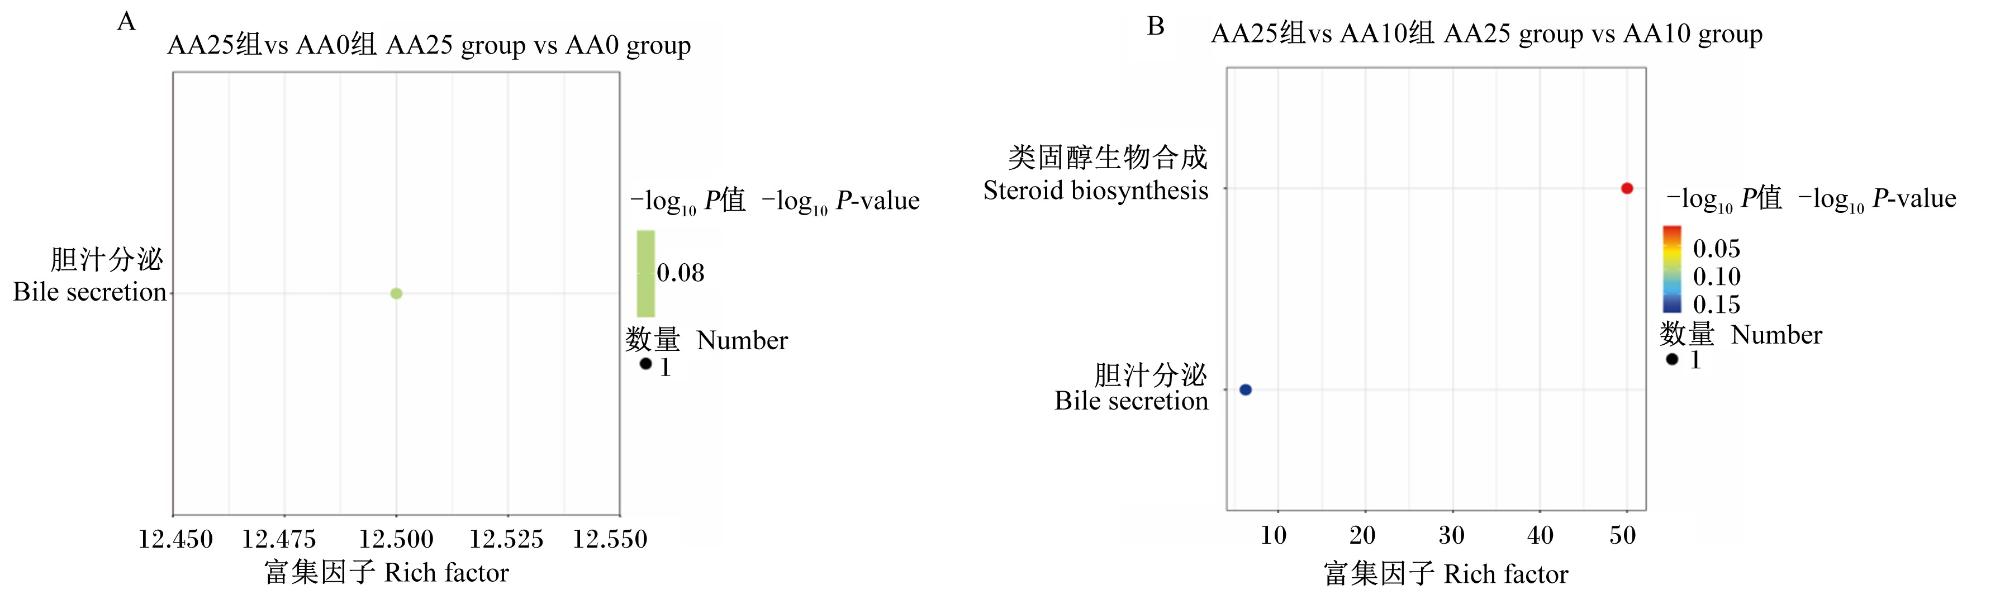
对差异代谢物进行KEGG信号通路分析,在AA25与AA0组之间发现了1条差异通路,即胆汁分泌(bile secretion)(图10-A);在AA25与AA10组之间发现了2条差异通路,分别为类固醇生物合成(steroid biosynthesis)和胆汁分泌(图10-B)。
图10 差异代谢通路气泡图

Fig.10 Differentially metabolic pathway bubble plots

3 讨论

3.1 黄花蒿对生长阻滞日本鳗鲡生长的影响

研究表明,黄花蒿作为天然促长剂在水产养殖中具有显著效果,例如,在低鱼粉饲料中添加0.25~1.00 g/kg酶解黄花蒿可改善大口黑鲈(Micropterus salmoides)的生长性能[17];短期投喂0.5%黄花蒿醇提取物可提高尼罗罗非鱼(Oreochromis niloticus)幼鱼的生长速度[18];但Hoseini等[19]研究表明,在高放养密度下,黄花蒿并不能改善鲤鱼(Cyprinus carpio)的生长阻滞现象;而在高棉籽粕饲料中添加0.8%青蒿素可提高卵形鲳鲹(Trachinotus ovatus)的增重率和特定生长率[20]。上述研究结果的差异可能与养殖动物种类及添加剂工艺有关。本研究发现,适量添加黄花蒿能显著提高生长阻滞日本鳗鲡的摄食量、增重率、特定生长率和蛋白质效率,并降低饲料系数,表明黄花蒿可能通过提高摄食和营养物质利用来改善生长阻滞日本鳗鲡的生长。现有研究证实,作为黄花蒿主要活性成分的青蒿素可提高动物对营养物质的利用率[21],且摄食量与体重及特定生长率呈正相关[22],这些发现支持了本研究的结果。
鱼类的肌肉营养组成可作为评价养殖效果和生长状况的重要指标,特别是蛋白质和脂肪,在调节生长、消化酶活性、代谢功能方面有着重要的作用[23]。与饲料中添加黄花蒿导致肉鸡肌肉中脂肪含量降低、蛋白质含量增加的研究结果[24]不同,本研究显示适量添加黄花蒿能同时提高肌肉蛋白质与脂肪含量。这一差异可能与日本鳗鲡自身的脂肪含量(8.62%~24.48%)高于多数常见鱼类[25]有关,进而导致黄花蒿在其体内产生独特的作用效应。

3.2 黄花蒿对生长阻滞日本鳗鲡消化能力的影响

鱼类的生长性能与营养物质消化吸收能力密切相关[26],消化酶活性作为消化吸收能力的表征指标,通常呈现从前肠、中肠至后肠的梯度下降趋势[27]。本研究发现,黄花蒿虽会降低胃中消化酶的活性,但可提高前肠中胰蛋白酶与α-淀粉酶活性,进而增强生长阻滞日本鳗鲡对饲料中蛋白质与碳水化合物的利用。然而,该结果与Dagar等[28]报道的含黄花蒿精油饲料抑制棉铃虫(Helicoverpa armigera)消化酶活性的结果的相反,这表明黄花蒿的生物学效应可能存在物种特异性。
肠道组织形态是评估动物对营养物质吸收能力的关键指标,其结构完整性直接影响消化酶活性与物质转运效率[29-30]。本研究结果显示,适量添加黄花蒿显著增加了生长阻滞日本鳗鲡前肠皱襞长度与宽度,表明其通过扩大吸收表面积及延长食糜滞留时间提升对营养物质的利用率,从而发挥促生长作用;然而,过量添加黄花蒿则会导致皱襞结构损伤,这可能与黄花蒿中的抗营养因子(如单宁)有关[31]。已有研究证实,黄花蒿提取物能够提高大口黑鲈肠道皱襞高度[32],而酶解黄花蒿能缓解肉鸡热应激诱导的肠道损伤[33]。上述结果为黄花蒿促生长作用提供了形态学与功能学证据,但其最佳添加量仍需深入探究。

3.3 黄花蒿中入肝活性成分的促生长作用机制

黄花蒿中的青蒿素类抗疟成分(青蒿素等)与黄酮类抗氧化及抗炎成分(泽兰黄醇等)构成核心功能性成分体系。在筛选出的调控生长阻滞潜在靶点中,SRCEGFRPIK3R1等核心基因通过介导细胞增殖与代谢平衡发挥关键作用,虽受限于样本资源而未进行验证,但多项独立研究支持其功能相关性。SRC编码的酪氨酸激酶通过介导EGFR磷酸化,激活下游磷脂酰肌醇3激酶(PI3K)-蛋白激酶B(AKT)信号通路,进而调控细胞抗凋亡与增殖进程[34-35];PIK3R1/PIK3CA构成的PI3K复合体通过维持葡萄糖代谢与蛋白质合成的动态平衡,促进肌肉组织生长[36];PTK2AB作为EGFR与Toll样受体(TLRs)信号串扰的关键中介因子,可能改善肠道健康并增强营养吸收效能[37]。尽管BCL2A等部分靶点的生物学功能仍需验证,上述发现可系统阐述黄花蒿通过多靶点协同调控生长的分子机制。
进一步的研究显示,黄花蒿含有177种潜在的入肝活性成分,其中黄酮类(如扁蓄苷)、皂苷类(如柴胡皂苷A)及萜类(如穿心莲定D)等化合物具有调节氧化应激[38]、免疫功能[39]、抗菌[40]与抗炎[41]等活性。黄花蒿中的一些活性成分可能在低剂量时能够促进生长相关基因表达,在高剂量时引发DNA损伤诱导转录因子4(DDIT4)介导的哺乳动物雷帕霉素靶蛋白(mTOR)通路抑制[42],在促增殖与促凋亡间建立动态平衡,这为后续剂量优化提供了关键性依据。肝脏非靶代谢组学分析显示,AA0组以抗生素(阿奇霉素)及合成中间体为主,通过抗生素应对环境压迫。在AA25组与AA0、AA10组间均富集到胆汁分泌通路,提示黄花蒿可能通过该通路途径改善生长阻滞日本鳗鲡的脂质代谢,增加肌肉脂肪沉积;AA25与AA10组间差异代谢物还富集于类固醇生物合成通路。维生素D2作为类固醇衍生物,其生物合成依赖于该代谢通路。已有研究表明维生素D2在促生长方面优于维生素D3[43],提示黄花蒿可能通过调控类固醇生物合成通路,促进维生素D2的合成与积累,从而改善生长性能。皂苷类(如柴胡皂苷A)与黄酮类(如扁蓄苷)可激活核受体法尼醇X受体(FXR)及膜受体G蛋白偶联胆汁酸受体5(TGR5),双重调控胆汁酸合成与肠肝循环[44],同时维生素D2上调可能通过维生素D受体(VDR)增强胆汁酸解毒功能[45];三萜皂苷(如刺五加皂苷Ⅺ)可作为类固醇前体,经细胞色素P450(CYP450)催化生成活性维生素D类似物[46];加上维生素D2通过结合VDR控制Th17细胞分化并促进调节性T细胞(Treg细胞)生成,与皂苷类成分的免疫调节功能形成协同效应[47];生物碱类(如胡蔓藤碱)可抑制致病菌生长,同时促进7α-疏水细菌[如裂胆酸梭菌(Clostridium scindens)]增殖,间接调节次级胆汁酸代谢[48]。上述结果表明,黄花蒿中多种活性成分进入肝脏,可能通过协同调控抗氧化、免疫及微生物稳态等途径,共同发挥保肝护肠及促生长作用。

4 结论

适量的黄花蒿能够通过提高生长阻滞日本鳗鲡的摄食量、增强肌肉蛋白质沉积及肠道中关键消化酶活性,改善前肠皱襞形态结构,最终促进其生长。基于整合网络药理学和代谢组学分析,本研究发现黄花蒿中的黄酮类、皂苷类等入肝活性成分的促生长机制涉及类固醇生物合成及胆汁分泌通路的调控,并通过多靶点调控生长阻滞日本鳗鲡的生长。
[1]
AHMED N, THOMPSON S. The blue dimensions of aquaculture:a global synthesis[J]. Science of the Total Environment, 2019, 652:851-861.

DOI

[2]
DU Y L, SONG A M, CHU L X, et al. The application of different bottom substrates in Penaeus japonicus culture:impact on growth,environmental factors, the microbial community and the hepatopancreas transcriptome[J]. Aquaculture, 2025, 598:742067.

DOI

[3]
ZHI X Y, GU Y X, ZHAO W L, et al. Dietary functional palatability enhancer improved growth and appetite in largemouth bass (Micropterus salmoides) fed a reduced fish meal diet[J]. Aquaculture Reports, 2025, 40:102598.

DOI

[4]
DALY B, SWINGLE J S, ECKERT G L. Increasing hatchery production of juvenile red king crabs (Paralithodes camtschaticus) through size grading[J]. Aquaculture, 2012,364/365:206-211.

[5]
SLAVÍK O, PEŠTA M, HORKÝ P. Effect of grading on energy consumption in European catfish Silurus glanis[J]. Aquaculture, 2011, 313(1/4):73-78.

DOI

[6]
ZENG X B, LIU J W, CHEN Y W, et al. Characterizing growth-retarded Japanese eels (Anguilla japonica):insights into metabolic and appetite regulation[J]. Metabolites, 2024, 14(8):432.

DOI

[7]
HRIDOY M A A M, MUNNY F J, SHAHRIAR F, et al. Exploring the potentials of sajana (Moringa oleifera Lam.) as a plant-based feed ingredient to sustainable and good aquaculture practices:an analysis of growth performance and health benefits[J]. Aquaculture Research, 2025, 2025:3580123.

DOI

[8]
CHEN G F, XU J, YUAN J, et al. The protective effect of dietary extract of Astragalus membranaceus on the high stocking density,copper and trichlorfon in Jian carp (Cyprinus carpio var. Jian)[J]. Aquaculture Reports, 2024, 37:102226.

DOI

[9]
DAI Q Q, ZHOU X Q, JIANG W D, et al. Application of enzymatically treated Artemisia annua L. on adult grass carp (Ctenopharyngodon idella):improved growth performance,intestinal antioxidant capacity and apical junctional complex[J]. Aquaculture, 2023, 575:739612.

DOI

[10]
ZORAL M A. Medicinal plants:are they safe enough for fish health?[J]. Aquaculture International, 2023, 31(2):1077-1096.

DOI

[11]
MO K B, SHEN Y, SU D H, et al. Pharmacokinetic-pharmacodynamic modeling of the immune-enhancing effect of shikimic acid in growing pigs[J]. Journal of Agricultural and Food Chemistry, 2024, 72(47):26224-26235.

DOI PMID

[12]
ZHENG X L, YANG N, MAO R Y, et al. Pharmacokinetics and pharmacodynamics of antibacterial peptide NZX in Staphylococcus aureus mastitis mouse model[J]. Applied Microbiology and Biotechnology, 2024, 108(1):260.

DOI

[13]
徐刚, 郁爱萍, 陆春胜, 等. 崇明“苦草”基源探究[J]. 亚太传统医药, 2021, 17(1):34-36.

DOI

XU G, YU A P, LU C S, et al. Research on the origin of bitter grass in Chongming[J]. Asia-Pacific Traditional Medicine, 2021, 17(01):34-36. (in Chinese)

[14]
江锐, 董博然, 季倩. 崇明苦草的种质分析与药用资源价值评价[J/OL]. 分子植物育种:1-8.(2024-11-29)[2025-03-19]. https://link.cnki.net/urlid/46.1068.s.20241128.1646.008.

JIANG R, DONG B R, JI Q. Germplasm evaluation and medicinal resource assessment of Chongming Kucao[J/OL]. Molecular Plant Breeding:1-8.(2024-11-29)[2025-03-19]. https://link.cnki.net/urlid/46.1068.s.20241128.1646.008. (in Chinese)

[15]
WANT E J, MASSON P, MICHOPOULOS F, et al. Global metabolic profiling of animal and human tissues via UPLC-MS[J]. Nature Protocols, 2013, 8(1):17-32.

DOI PMID

[16]
ZHANG A H, SUN H, YAN G L, et al. Mass spectrometry-based metabolomics:applications to biomarker and metabolic pathway research[J]. Biomedical Chromatography, 2016, 30(1):7-12.

DOI

[17]
DAI X, ZHU S, YE J, et al. Effects of dietary enzymatically treated Artemisia annua L. in low fish meal diet on growth,antioxidation,metabolism and intestinal health of Micropterus salmoides[J]. Aquaculture Reports, 2023, 33:101843.

DOI

[18]
SOARES M P, DE ANGELIS C F, SILVA L M, et al. Short-term feeding with a diet supplemented with alcoholic extract of Artemisia annua enhances the resistance and growth performance of juvenile Nile tilapia (Oreochromis niloticus)[J]. Aquaculture International, 2024, 32(3):2773-2789.

DOI

[19]
HOSEINI S M, AYDIN B, HOSEINIFAR S H, et al. Dietary artemisia,Artemisia annua,supplementation improves common carp welfare under high stocking density[J]. Aquaculture Research, 2022, 53(9):3494-3503.

DOI

[20]
LIN Z, PAN L, XIE R, et al. Artemisinin supplementation improves growth,lipid metabolism,and intestinal microbiota of golden pompano (Trachinotus ovatus) fed high cottonseed meal diets[J]. Aquaculture Reports, 2024, 39:102479.

DOI

[21]
NIU Y, ZHAO Y W, HE J T, et al. Dietary dihydroartemisinin supplementation improves growth, intestinal digestive function and nutrient transporters in weaned piglets with intrauterine growth retardation[J]. Livestock Science, 2020, 241:104264.

DOI

[22]
SKOV P V, DUODU C P, ADJEI-BOATENG D. The influence of ration size on energetics and nitrogen retention in tilapia (Oreochromis niloticus)[J]. Aquaculture, 2017, 473:121-127.

DOI

[23]
LIU S C, LIU S J, SUN Z Q, et al. Effects of dietary lipid and protein levels on growth,body composition,antioxidant capacity,and flesh quality of Mandarin fish (Siniperca chuatsi)[J]. Aquaculture International, 2024, 33(1):78.

DOI

[24]
EL-RAYES T K, EL BASUINI M F, ELGHIOUSHY A B, et al. Dietary inclusion of Artemisia annua Improves antioxidant performance,immunoglobulin protein levels,lipid profile,carcass characteristics,meat quality,and histomorphometric features of broiler chickens[J]. Annals of Animal Science, 2025, 25(1):225-238.

DOI

[25]
罗鸣钟, 关瑞章, 靳恒. 五种鳗鲡的含肉率及肌肉营养成分分析[J]. 水生生物学报, 2015, 39(4):714-722.

LUO M Z, GUAN R Z, JIN H. Analysis on the ratio of flesh content and the nutritional composition in the muscle of five species of eel[J]. Acta Hydrobiologica Sinica, 2015, 39(4):714-722. (in Chinese)

[26]
YU X, WU Z, GUO J, et al. Replacement of dietary fish meal by soybean meal on growth performance,immunity,anti-oxidative capacity and mTOR pathways in juvenile abalone Haliotis discus hannai Ino[J]. Aquaculture, 2022, 551:737914.

DOI

[27]
毕冰, 孙中武, 肖晓文, 等. 鲤、鲢、鳙、草鱼消化道消化酶种类和活性的比较研究[J]. 水产学杂志, 2011, 24(2):17-20.

BI B, SUN Z W, XIAO X W, et al. Active comparison of digestive enzymes in digestive tracts in common carp Cyprinus carpio,silver carp Hypophthalmichthys molitrix,grass carp Ctenopharyngodon idellus and bighead carp Aristichthys mobilis[J]. Chinese Journal of Fisheries, 2011, 24(2):17-20. (in Chinese)

[28]
DAGAR V S, MISHRA M, SHARMA A, et al. Alterations in the gut enzymes of Helicoverpa armigera (Hübner) induced by dietary Artemisia annua L. essential oil[J]. International Journal of Tropical Insect Science, 2023, 43(4):1295-1303.

DOI

[29]
李晋南, 王常安, 张圆圆, 等. 高淀粉水平下精氨酸对松浦镜鲤肠道形态与功能的影响[J]. 广东海洋大学学报, 2021, 41(1):39-46.

LI J N, WANG C A, ZHANG Y Y, et al. Effect of arginine supplementation in high starch diets on intestinal digestive enzyme activities and intestinal morphology of Songpu mirror carp(Cyprinus carpio L.)[J]. Journal of Guangdong Ocean University, 2021, 41(1):39-46. (in Chinese)

[30]
STOSIK M, TOKARZ-DEPTUŁA B, DEPTUŁA W. Immunity of the intestinal mucosa in teleost fish[J]. Fish & Shellfish Immunology, 2023, 133:108572.

[31]
FAN Z, CHENG M, WANG L, et al. Feasibility evaluation of fermented peanut meal to replace soybean meal in the diet of common carp (Cyprinus carpio):growth performance,serum biochemistry,intestinal health and microflora composition[J]. Aquaculture Reports, 2023, 31:101675.

DOI

[32]
HE G L, SUN H, LIAO R S, et al. Effects of herbal extracts (Foeniculum vulgare and Artemisia annua) on growth,liver antioxidant capacity,intestinal morphology and microorganism of juvenile largemouth bass,Micropterus salmoides[J]. Aquaculture Reports, 2022, 23:101081.

DOI

[33]
SONG Z H, CHENG K, ZHENG X C, et al. Effects of dietary supplementation with enzymatically treated Artemisia annua on growth performance,intestinal morphology,digestive enzyme activities,immunity,and antioxidant capacity of heat-stressed broilers[J]. Poultry Science, 2018, 97(2):430-437.

DOI

[34]
ROSKOSKI R J. Src protein-tyrosine kinase structure,mechanism,and small molecule inhibitors[J]. Pharmacological Research, 2015, 94:9-25.

DOI

[35]
MADORSKY ROWDO F P, MARTINI R, ACKERMANN S E, et al. Kinome-focused CRISPR-Cas9 screens in African ancestry patient-derived breast cancer organoids identify essential kinases and synergy of EGFR and FGFR1 inhibition[J]. Cancer Research, 2025, 85(3):551-566.

[36]
HOLMES D. PI3K pathway inhibitors approach junction[J]. Nature Reviews Drug Discovery, 2011, 10(8):563-564.

DOI PMID

[37]
KIM J Y, SHIN J H, KIM M J, et al. PTK2 is a potential biomarker and therapeutic target for EGFR- or TLRs-induced lung cancer progression via the regulation of the cross-talk between EGFR- and TLRs-mediated signals[J]. Biomarker Research, 2024, 12(1):52.

DOI PMID

[38]
YANG S, FANG Z, DUAN H, et al. Ginsenoside Rg1 alleviates blood-milk barrier disruption in subclinical bovine mastitis by regulating oxidative stress-induced excessive autophagy[J]. Antioxidants, 2024, 13(12):1446.

DOI

[39]
袁林, 李万利, 靳玮, 等. 柴胡皂苷的生物学功能研究进展[J]. 中国兽医学报, 2024, 44(6):1307-1315.

YUAN L, LI W L, JIN W, et al. Research progressin biological functions of saikosaponins[J]. Chinese Journal of Veterinary Science, 2024, 44(6):1307-1315. (in Chinese)

[40]
SINHA B N, BANSAL S K, PATTNAIK A K. Phytochemical and antimicrobial activity of extracts,fractions and betulin,7-methyl juglone obtained from Diospyros paniculata[J]. Journal of Natural Remedies, 2009, 9(1):99-102.

[41]
徐华明, 杨柳, 闫五玲, 等. 人参皂苷F2对胆汁淤积肝损伤小鼠抗炎、抗氧化、抗纤维化和抗凋亡的作用机制[J]. 药物评价研究, 2025, 48(1):38-50.

XU H M, YANG L, YAN W L, et al. Study on mechanism of ginsenoside F2 on inflammation,oxidation,and fibrosis in mice with cholestatic liver injury[J]. Drug Evaluation Research, 2025, 48(1):38-50. (in Chinese)

[42]
TANG W C, PAN Y, ZHU C, et al. DDIT4/mTOR signaling pathway mediates cantharidin-induced hepatotoxicity and cellular damage[J]. Frontiers in Pharmacology, 2024, 15:1480512.

DOI

[43]
DUFFY S K, KELLY A K, RAJAURIA G, et al. The use of synthetic and natural vitamin D sources in pig diets to improve meat quality and vitamin D content[J]. Meat Science, 2018, 143:60-68.

DOI PMID

[44]
LEFEBVRE P, CARIOU B, LIEN F, et al. Role of bile acids and bile acid receptors in metabolic regulation[J]. Physiological Reviews, 2009, 89(1):147-191.

DOI PMID

[45]
CHIANG J Y L. Bile acid metabolism and signaling[J]. Comprehensive Physiology, 2013, 3(3):1191-1212.

DOI PMID

[46]
PORTE S, JOSHI V, SHAH K, et al. Plants’steroidal saponins—a review on its pharmacology properties and analytical techniques[J]. World Journal of Traditional Chinese Medicine, 2022, 8(3):350-385.

DOI

[47]
PRIETL B, TREIBER G, PIEBER T R, et al. Vitamin D and immune function[J]. Nutrients, 2013, 5(7):2502-2521.

DOI PMID

[48]
RIDLON J M, KANG D J, HYLEMON P B, et al. Bile acids and the gut microbiome[J]. Current Opinion in Gastroenterology, 2014, 30(3):332-338.

DOI PMID

Outlines

/