RESEARCH PAPER

Effects of Replacing Fish Meal with Enzymatically Hydrolyzed Soybean Meal on Growth Performance, Muscle Growth and Development, and Meat Quality of Chinese Soft-Shelled Turtles (Pelodiscus sinensis)

  • WEI Yucheng , 1 ,
  • HU Zhijun 2 ,
  • LUO Hao 3 ,
  • ZHANG Junzhi 1 ,
  • LI Quan 1 ,
  • WANG Shao 1 ,
  • ZHOU Yingxiang 1 ,
  • HOU Shangfeng 1 ,
  • HU Yi , 1, * ,
  • FU Guihong , 1, *
Expand
  • 1 Fisheries College, Hunan Agricultural University, Changsha 410128, China
  • 2 Jiangsu Fuhai Biotech Co., Ltd., Nantong 226600, China
  • 3 Zhangjiajie Xinrui Biotech Feed Co., Ltd., Zhangjiajie 427000, China
* HU Yi, professor, E-mail: ;
FU Guihong, associate professor, E-mail:

Received date: 2025-12-23

  Online published: 2026-07-14

Abstract

This experiment was conducted to investigate the effects of replacing fish meal with soybean meal and different proportions of enzymatically hydrolyzed soybean meal on growth performance, muscle growth and development, and meat quality of Chinese soft-shelled turtles (Pelodiscus sinensis). A total of 456 healthy Pelodiscus sinensis with uniform size and an initial body weight of (36.00±0.04) g were selected. Six turtles were randomly chosen for initial body composition analysis, and the remaining 450 turtles were randomly assigned to 5 groups with 3 replicates per group and 30 turtles per replicate. The 5 groups were fed 5 isonitrogenous and isolipidic diets (approximately 46% crude protein and 6.5% ether extract): a basal diet containing 55% fish meal (ESBM0, control), a diet in which 10 percentage points of fish meal were replaced by soybean meal (SBM10), and diets in which 5 (ESBM5), 10 (ESBM10) and 15 (ESBM15) percentage points of fish meal were replaced by enzymatically hydrolyzed soybean meal, respectively. The experiment lasted 56 days. The results showed as follows: 1) compared with the ESBM0 group, the SBM10 group exhibited significantly decreased whole-body crude protein and ether extract contents; muscle contents of glutamate, aspartate, lysine, leucine, valine, total essential amino acids and total flavor amino acids; intestinal amylase, lipase and trypsin activities; muscle catalase (CAT) activity, reduced glutathione (GSH) content and glutathione reductase activity coefficient (GRAC); muscle springiness; and the mRNA relative expression levels of muscle muscleblind-like protein 1 (MBNL1), myogenic factor 5 (MYF5) and uncoupling protein 3 (UCP3) (P<0.05). While muscle hardness, adhesiveness and gumminess, muscle fiber cross-sectional area and diameter, and the mRNA relative expression levels of muscle F-box protein 32 (FBXO32), myostatin (MSTN), UNC-51-like kinase 1 (ULK1), beclin-1 (BECN1), microtubule-associated protein 1 light chain 3 beta (MAP1LC3B) and lysosome-associated membrane protein 1 (LAMP1) in the SBM10 group were significantly increased (P<0.05). Compared with the ESBM0 group, the ESBM10 group showed significantly increased final body weight, weight gain rate, specific growth rate, protein efficiency ratio and protein deposition rate; whole-body crude protein and ether extract contents; muscle contents of glutamate, lysine, leucine, threonine, total essential amino acids and total flavor amino acids; intestinal lipase and trypsin activities; muscle CAT activity and GSH content; and the mRNA relative expression levels of muscle muscle regulatory factor 4 (MRF4), MBNL1, MYF5, UCP3, protein kinase B1 (AKT1), eukaryotic initiation factor 4E (EIF4E) and ribosomal S6 kinase 1 (S6K1) (P<0.05), whereas feed conversion ratio, muscle hardness and the muscle LAMP1 mRNA relative expression level were significantly decreased (P<0.05). 2) Compared with the ESBM10 group, both ESBM5 and ESBM15 groups had significantly decreased whole-body ether extract content, muscle contents of aspartate, lysine, threonine and total essential amino acids, intestinal lipase activity, and the muscle mRNA relative expression levels of MRF4, MBNL1, AKT1 and EIF4E (P<0.05), whereas muscle hardness and the muscle mRNA relative expression levels of MSTN, BECN1 and MAP1LC3B were significantly increased (P<0.05). The ESBM5 group significantly decreased whole-body crude protein content, muscle CAT activity, GSH content and muscle fiber density (P<0.05). The ESBM15 group significantly decreased final body weight, weight gain rate, specific growth rate, protein efficiency ratio and protein deposition rate (P<0.05), and significantly increased feed conversion ratio (P<0.05). In conclusion, under the present experimental conditions, replacing fish meal with enzymatically hydrolyzed soybean meal at levels not exceeding 15 percentage points promotes growth, enhances muscle growth and development, and improves meat quality of Pelodiscus sinensis, with the optimal replacement level being 10 percentage points.

Cite this article

WEI Yucheng , HU Zhijun , LUO Hao , ZHANG Junzhi , LI Quan , WANG Shao , ZHOU Yingxiang , HOU Shangfeng , HU Yi , FU Guihong . Effects of Replacing Fish Meal with Enzymatically Hydrolyzed Soybean Meal on Growth Performance, Muscle Growth and Development, and Meat Quality of Chinese Soft-Shelled Turtles (Pelodiscus sinensis)[J]. Chinese Journal of Animal Nutrition, 2026 , 38(7) : 5324 -5343 . DOI: 10.12418/CJAN2026.426

中华鳖(Pelodiscus sinensis)隶属于龟鳖目(Testudines)、鳖科(Trionychidae)、鳖属(Pelodiscus),广泛分布于中国、日本、韩国、越南等多个亚洲国家[1]。因其兼具丰富的营养价值与药用价值,中华鳖养殖业近年来发展迅速。据《2025中国渔业统计年鉴》数据显示,2024年中国鳖总产量达54.16万t,较上年增长8.13%,鳖已成为中国重要的水产养殖物种之一[2]。中华鳖对动物源蛋白质饲料原料具有较高的需求量[3]。目前,中华鳖饲料依赖进口鱼粉作为主要蛋白质来源,但受多种因素影响,鱼粉价格居高不下,寻找替代鱼粉的廉价高效蛋白质原料以降低饲料成本已成为当前研究的热点。植物源蛋白质饲料如豆粕,因其优越的蛋白质含量、均衡的氨基酸组成、稳定的供应和经济的成本,已被认为是鱼粉的理想替代品,在水产饲料中得到广泛应用[4]。但由于豆粕中含有大量抗营养因子,过量替代会干扰水生动物营养代谢,影响其肌肉生长发育和肉品质,限制了其在饲料中的大量应用[5]。目前,去除豆粕抗营养因子最常用的方法包括微生物发酵和酶解处理。微生物发酵能有效去除抗营养因子,但处理时间长、设备复杂,对菌剂活性和安全性控制难度大,这显著增加豆粕的使用成本。相比之下,酶解处理技术可针对抗营养因子提供切实可行且具备规模化应用潜力的解决方案,同时规避上述缺陷,使其成为水产饲料中豆粕优化处理的有效技术途径[6]
豆粕经酶解处理后能有效降解胰蛋白酶抑制剂、凝集素和植酸等抗营养因子,缓解其对水生动物消化吸收功能的抑制作用,提高蛋白质和矿物质的利用率,促进水生动物肌肉发育及改善肉品质[7]。对大口黑鲈(Micropterus salmoides)幼鱼的研究中发现,酶解豆粕替代10%鱼粉对肌肉脂肪含量无显著影响,但显著降低肌肉中二十二碳五烯酸(C22∶5n-3)含量[8]。酶解豆粕替代40%鱼粉时珍珠龙胆石斑鱼(Epinephelus fuscoguttatus×Epinephelus lanceolatus)幼鱼肌肉粗蛋白质含量显著升高,替代40%~80%鱼粉时肌肉粗脂肪含量显著降低,肌肉氨基酸含量无显著变化[9]。酶解豆粕替代75%鱼粉时鲍鱼(Haliotis)肌肉中哺乳动物雷帕霉素靶蛋白(mTOR)通路显著上调[10]。目前,酶解豆粕在中华鳖肌肉生长发育与肉品质中的应用鲜有报道。
本试验以豆粕和酶解豆粕等比例替代鱼粉,研究不同形式豆粕对中华鳖稚幼鳖生长性能、肌肉生长发育及肉品质的影响;在此基础上,进一步设置不同梯度的酶解豆粕替代鱼粉,系统研究其对中华鳖稚幼鳖上述指标的影响,以期为酶解豆粕在中华鳖饲料中的合理应用提供理论基础。

1 材料与方法

1.1 伦理声明

本试验获得了湖南农业大学生物医学研究伦理委员会批准,试验参与人员操作严格遵守道德伦理规范与规章制度执行,批准号为湖南农业大学伦审科第(180)号。

1.2 试验材料

酶解豆粕由江苏富海生物科技有限公司提供,其制备过程中采用蛋白酶与非淀粉多糖酶协同酶解,所得水解产物的主要成分为大豆寡肽,肽分子质量分布见表1。其余饲料原料购于张家界市新瑞生物饲料有限公司。
表1 酶解豆粕肽分子质量分布(占总蛋白质比例)

Table 1 Molecular weight distribution of enzymatically hydrolyzed soybean meal peptides (as a percentage of total protein) %

分子质量
Molecular weight
比例
Percentage
>10 000 3.32
5 000~10 000 3.68
3 000~5 000 3.27
2 000~3 000 2.99
1 000~2 000 7.00
500~1 000 8.57
196~500 18.01
<196 7.00
合计Total 53.84

1.3 试验饲料

采用豆粕、酶解豆粕替代鱼粉设置5种等氮等脂饲料(约46%粗蛋白质和6.5%粗脂肪):含55%鱼粉基础饲料(ESBM0,对照)、豆粕替代10个百分点鱼粉的试验饲料(SBM10)及酶解豆粕分别替代5(ESBM5)、10(ESBM10)、15个百分点鱼粉的试验饲料(ESBM15)。试验饲料的蛋白质来源为白鱼粉、毛塔红鱼粉、鸡肉粉、豆粕和酶解豆粕,脂肪源为鱼油和豆油,试验饲料组成及营养水平见表2。原料经充分粉碎后过80目筛,依据配制比例逐级混合。初步混匀后加入大豆油,于混合机中搅拌10 min以确保混合均匀。制得的饲料分装后置于-20 ℃保存直至投喂。投喂前向粉状饲料中加入约20%的水使其软化,揉捏制成面团状后进行投喂,1 h后进行残饵收集,晒干称重。
表2 试验饲料组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of the experimental diets (DM basis) %

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
原料Ingredients
白鱼粉Whitefish meal 40.00 34.00 37.00 34.00 31.00
毛塔红鱼粉Mauta redfish meal 15.00 11.00 13.00 11.00 9.00
鸡肉粉Chicken meal 14.00 14.00 14.00 14.00 14.00
豆粕Soybean meal 16.00
酶解豆粕Enzymatically hydrolyzed soybean meal 7.00 14.00 21.00
α-淀粉Alpha starch 19.00 19.00 19.00 19.00 19.00
鱼油Fish oil 0.65 0.33 0.65 0.98
大豆油Soybean oil 1.00 0.75 0.80 0.72 0.62
微晶纤维素Microcrystalline cellulose 7.56 1.16 5.43 3.19 0.96
磷酸二氢钙Ca(H2PO4)2 2.00 2.00 2.00 2.00 2.00
预混料Premix1) 1.00 1.00 1.00 1.00 1.00
胆碱Choline 0.40 0.40 0.40 0.40 0.40
抗氧化剂Antioxidant2) 0.01 0.01 0.01 0.01 0.01
防霉剂Anti-mold agent3) 0.03 0.03 0.03 0.03 0.03
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels4)
粗蛋白质CP 45.91 46.59 45.93 45.95 45.98
粗脂肪EE 6.58 6.47 6.52 6.56 6.60

1)每千克预混料含有 One kilogram of the premix contained the following:VA 150 000 IU,VD3 110 000 IU,VE 4 000 mg,VK3 4 000 mg,VB1 800 mg,VB2 1 450 mg,VB6 2 500 mg,VB12 3 mg,VC 16 000 mg;D-泛酸钙 D-calcium pantothenate 1 250 mg,烟酰胺 nicotinamide 8 000 mg,叶酸 folic acid 250 mg,生物素 biotin 10 mg,肌醇 inositol 6 000 mg,Mg 6 000 mg,Zn 4 300 mg,Mn 650 mg,Co 410 mg,Fe 5 900 mg,Co 100 mg,I 75 mg,Se 25 mg。

2)抗氧化剂主要成分是乙氧基喹啉。The main component of antioxidant was ethoxyquinoline.

3)防霉剂主要成分是丙酸钙。The main component of anti-mold agent was calcium propionate.

4)营养水平为实测值。Nutrient levels were measured values.

1.4 试验动物与饲养管理

养殖试验在张家界市慈利县进行,试验动物为同批次人工孵化外塘鳖苗,试验前在室外帆布池中投喂商品饲料暂养5 d后,挑选个体大小均匀、体格健壮中华鳖于帆布池(1.5 m×1.5 m×1.0 m)内投喂基础饲料驯化7 d,饥饿24 h后,挑选体质健康、规格均匀的456只中华鳖[体重(36.00±0.04) g]进行养殖试验。随机选取6只用于初始体成分测定,其余450只中华鳖随机分成5组,每组3个重复,每个重复30尾。5组分别饲喂5种等氮等脂饲料,试验期56 d。所有重复均使用规格、材质一致的帆布池(1.5 m×1.5 m×1.0 m),日投喂量为体重1.5%~2.0%,并根据中华鳖的摄食情况每周相应调整。每天分2次投喂(08:00和16:00),养殖期间时刻关注养殖水体情况,保持水温为(30.60±0.24) ℃、溶解氧含量≥5.0 mg/L、氨氮含量<0.4 mg/L、pH为7.5~8.0。

1.5 样品采集

养殖试验开始前,选6只用于初始体成分测定。养殖试验结束后,禁食24 h,分别对各重复的中华鳖进行计数和称重,随后使用丁香酚(1∶12 000,上海麦克林生化科技股份有限公司)将中华鳖麻醉。每个重复随机选取9只中华鳖进行解剖:其中3只分别取部分后腿肌肉组织用于肌肉质构的测定,并取适量肌肉组织装入2 mL无酶管中,在-20 ℃下保存以便测定抗氧化酶活;另外3只中华鳖取后腿肌肉组织固定于多聚甲醛溶液中以制备肌肉组织切片,剩余肌肉组织装入1.5 mL无菌管中,再取肠组织装入1.5 mL无菌管中,迅速置入液氮中冷冻,并于-80 ℃下保存,用于肌肉组织总RNA提取、肌肉氨基酸含量以及肠道消化酶活性测定;其余3只中华鳖用于终末体成分测定。

1.6 指标测定与方法

1.6.1 生长性能和蛋白质沉积率测定

养殖试验开始前,记录每个帆布池中中华鳖数量及重量,养殖期间记录中华鳖摄食量;养殖试验结束后,禁食24 h,记录每个帆布池中中华鳖数量及重量,根据1.5.2方法测定饲料及全鳖的粗蛋白质含量,计算成活率(survival rate,SR)、增重率(weight gain rate,WGR)、特定生长率(specific growth rate,SGR)、饲料系数(feed conversion ratio,FCR)、蛋白质效率(protein efficiency ratio,PER)及蛋白质沉积率(protein deposition rate,PDR),计算公式如下所示。
成活率(%)=100×N2/N1;
增重率(%)=100×(W2-W1)/W1;
特定生长率(%/d)=100×(lnW2-lnW1)/t;
饲料系数(FCR)=F/(Wt-W0);
蛋白质效率(%)=100×(Wt-W0)/(F×CP);
蛋白质沉积率(%)=100×(Wt×CPt-W0×CP0)/(F×CP)。
式中:N2为终末数量;N1为初始数量;W0为初始总重;Wt为终末总重;W1为初重;W2为末重;CP为饲料中粗蛋白质含量;CP0为初始全鳖的粗蛋白质含量;CPt为终末全鳖的粗蛋白质含量;F为总摄食量;t为试验天数。

1.6.2 饲料营养物质含量及全鳖体成分测定

全鳖的水分含量按照GB/T 6435—2014的方法在105 ℃烘箱中干燥至恒重测定。饲料及全鳖的粗蛋白质和粗脂肪含量分别按照GB/T 6432—2018、GB/T 6433—2006的方法测定,所用仪器分别为全自动凯氏定氮仪(VAP450,Gerhardt,德国)和索氏抽提仪(Huier SCT-06,杭州汇尔仪器设备有限公司)。

1.6.3 肠道消化酶指标测定

取肠道组织进行称重,按照重量(g)∶体积(mL)=1∶9加入9倍体积的匀浆介质,充分匀浆后,以590×g离心10 min,吸取上清液,用于后续指标测定。使用南京建成生物工程研究所的试剂盒测定肠道淀粉酶、脂肪酶、胰蛋白酶活性,具体操作参照试剂盒说明书。

1.6.4 肌肉抗氧化指标测定

取后腿肌肉进行称重,按照重量(g)∶体积(mL)=1∶9加入9倍体积的生理盐水,充分匀浆后,4 ℃条件下1 160×g离心10 min,吸取上清液,得到10%肌肉匀浆上清液,用于后续指标测定。使用南京建成生物工程研究所的试剂盒测定肌肉过氧化氢酶(CAT)和谷胱甘肽还原酶活性系数(GRAC)及还原型谷胱甘肽(GSH)含量,具体操作参照试剂盒说明书。

1.6.5 肌肉氨基酸组成分析

肌肉氨基酸组成及含量参照《食品安全国家标准 食品中氨基酸的测定》(GB 5009.124—2016)的方法,采用酸水解进行前处理,使用全自动氨基酸分析仪(S-433D,SYKAM,德国)进行检测。

1.6.6 肌肉质构分析

取后腿肌肉(1.0 cm×1.0 cm×1.0 cm),采用质地分析仪(TA-XT Express,Stable Micro Systems,英国)对其肌肉硬度、黏附性、内聚性、弹性、胶黏性及咀嚼性进行测定。该测定采用质构轮廓分析(TPA)模式,选用P36/R型探头;主要测试参数设定如下:预测试速度为1 mm/s,测试后速度为2 mm/s,实际测试过程中保持1 mm/s的恒定速度,压缩比设为50%。

1.6.7 肌肉组织学分析

将后腿肌肉组织依次经不同浓度梯度乙醇脱水、二甲苯透明化处理,随后进行石蜡包埋。采用旋转切片机(RM2235,Leica,德国)将包埋组织块连续切片,切片厚度设定为10 μm。将切片置于45 ℃烘箱中烘干后进行脱蜡与水化处理,流程依次为:二甲苯脱蜡、梯度乙醇(浓度递减)处理,最后用蒸馏水浸洗。脱蜡后的切片使用苏木精-伊红(HE)进行染色后,在光学显微镜(E600,Nikon,日本)下观察,每组选3张切片,每张切片选取7个视野拍摄图像,利用ImageJ软件对其肌纤维横截面积、直径进行测量后取平均值,肌纤维密度通过统计视野内肌纤维根数平均值除以视野面积计算得到。

1.6.8 实时荧光定量PCR

以后腿肌肉组织提取的RNA为模板,采用反转录试剂盒(HiScript,南京诺唯赞生物科技股份有限公司)合成cDNA。进行实时荧光定量PCR,反应体系总体积为12.5 μL,包含2×Taq Pro Universal SYBR qPCR Master Mix(Q712-02,南京诺唯赞生物科技股份有限公司)6 μL、上下游引物各0.5 μL、cDNA模板0.5 μL以及焦碳酸二乙酯(DEPC)水5 μL。PCR扩增程序设置如下:95 ℃预变性10 min;随后进行40个循环,每循环包括95 ℃ 15 s、58 ℃ 30 s和72 ℃ 32 s。以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,并以ESBM0组作为校准对照组,通过2-ΔΔCt法计算目的基因的mRNA相对表达量,其中引物信息见表3
表3 引物信息表

Table 3 Primer information table

基因Genes 上游引物Forward primer(5'—3') 下游引物Reverse primer(5'—3')
F-box蛋白32 FBXO32 TTTATGTCCACAAGGGAAGCAC GCTATCAGCTCCAACAGCCTTA
肌肉生长抑制素MSTN TGGTCCAGTGGCTCTTAATGA TTGCTCCAGACGAAGTTTGCT
肌细胞生成素4 MRF4 TCTCAAACGGAGGACTGTGG CTCAGGAAATCGGAGGTTGG
肌盲样剪接调节蛋白1 MBNL1 TATGGGTATCTGGTTGGCTGTG CAGTTACAACAGCATACAGCCTTC
肌源性因子5 MYF5 CGTGGTAAATGAGCCTGGAGT TTACTGCCCGGACATCCACA
解偶联蛋白3 UCP3 AAGACGGAGGGTCCCACAAGT CATCCACAGTCCCGTTGTATTTC
雷帕霉素靶蛋白TOR ATGGCAAGAGAGCAGGACTGAG TGATCTGTTCTCGGGCCTTCAG
蛋白激酶B1 AKT1 ACTCCGGAATATCTTGCACCAG TGCGTGGAAACCTAATCTCCTC
真核翻译起始因子4E EIF4E GGATGGGATTGAACCAATGTGG GCGCCACATACATCATCACTG
核糖体蛋白S6激酶1 S6K1 GGAGATGCTGCAGAAGTTCAGG ACCTGGTTGGCACTTTCACTG
UNC-51样激酶1 ULK1 AGAGCTGCCTGAAGAGACACTC CTGATTTGGTCAGCCACCACAC
自噬相关基因1 BECN1 TGTCAACAGAAAGTGCCAACAG TGGTCAAGAAGGGTATCTGTGC
溶酶体相关膜蛋白1 LAMP1 AAGCCAAGCACCAACATCC TCACAGCTCCCAGAGAAAGATG
微管相关蛋白1轻链3β MAP1LC3B TGTGCGACTGATTCGAGATCAG AGCCTGAGTGGAATTCAGCTG
甘油醛-3-磷酸脱氢酶GAPDH TCTGAAAGTTGTCAGCAATGCC TCTCGCCATAACTTCCCAGAG

1.7 数据统计分析

数据采用SPSS 25.0软件进行统计分析,使用Python 3.14.2进行图表绘制。首先对数据的正态性及方差齐性进行检验。对于符合正态分布且方差齐性的数据,采用单因素方差分析(one-way ANOVA),然后采用Tukey’s HSD法进行组间比较。若数据不满足上述假设,则使用Kruskal-Wallis检验进行分析,再采用Dunn检验进行组间比较。结果用平均值±标准误(mean±SE)表示,P<0.05表示差异显著。

2 结果

2.1 酶解豆粕替代鱼粉对中华鳖生长性能和蛋白质沉积率的影响

表4可知,与ESBM0组相比,SBM10组中华鳖的末重、增重率、特定生长率、饲料系数、成活率、蛋白质效率及蛋白质沉积率均无显著差异(P>0.05);ESBM10组末重、增重率、特定生长率、蛋白质效率及蛋白质沉积率均显著增加(P<0.05),饲料系数显著降低(P<0.05)。
表4 酶解豆粕替代鱼粉对中华鳖生长性能和蛋白质沉积率的影响

Table 4 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on growth performance and protein deposition rate of Pelodiscus sinensis

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
初重IBW/g 36.00±0.04 36.08±0.08 36.07±0.04 36.13±0.00 35.96±0.04
末重FBW/g 70.12±1.90cd 66.97±1.69d 84.74±2.77ab 89.29±0.65a 81.83±1.87b
增重率WGR/% 94.80±5.48cd 85.61±4.39d 134.95±7.65ab 147.11±1.81a 127.58±5.36b
饲料系数FCR 1.71±0.07a 1.67±0.16a 1.30±0.07b 1.34±0.00b 1.68±0.03a
特定生长率SGR/(%/d) 1.19±0.05cd 1.10±0.04d 1.58±0.06ab 1.68±0.01a 1.52±0.04b
成活率SR/% 94.44±2.94 95.56±2.22 96.67±1.92 93.33±1.92 95.56±2.94
蛋白质效率PER/% 127.42±5.09b 124.61±7.16b 168.59±8.73a 162.76±0.46a 129.57±2.25b
蛋白质沉积率PDR/% 18.39±1.31b 16.34±0.69b 23.69±1.59a 25.85±1.33a 19.92±0.44b

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

与ESBM10组相比,ESBM5组末重、增重率、特定生长率、饲料系数、成活率、蛋白质效率及蛋白质沉积率无显著差异(P>0.05);ESBM15组末重、增重率、特定生长率、蛋白质效率及蛋白质沉积率显著降低(P<0.05),而饲料系数显著增加(P<0.05)。

2.2 酶解豆粕替代鱼粉对中华鳖体成分的影响

表5可知,与ESBM0组相比,SBM10组中华鳖全鳖粗蛋白质及粗脂肪含量显著降低(P<0.05),ESBM10组全鳖粗蛋白质及粗脂肪含量显著提高(P<0.05)。
表5 酶解豆粕替代鱼粉对中华鳖体成分的影响

Table 5 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on body composition of Pelodiscus sinensis %

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
水分Moisture 72.25±0.88bc 71.89±0.43c 73.93±0.82ab 74.10±0.40ab 74.52±0.23a
粗蛋白质CP 54.79±0.07bc 52.94±0.38d 54.19±0.70c 56.19±0.25a 55.93±0.18ab
粗脂肪EE 9.51±0.26b 6.44±0.18c 7.96±0.85bc 12.41±0.41a 9.43±0.84b

水分含量以鲜重基础进行计算,粗蛋白质及粗脂肪含量以干物质基础进行计算。

Moisture content was calculated on a fresh weight basis, whereas crude protein and ether extract contents were calculated on a dry matter basis.

与ESBM10组相比,ESBM5组中华鳖全鳖粗蛋白质及粗脂肪含量显著降低(P<0.05),ESBM15组全鳖粗脂肪含量显著降低(P<0.05)。

2.3 酶解豆粕替代鱼粉对中华鳖肠道消化酶活性的影响

表6可知,与ESBM0组相比,SBM10组肠道淀粉酶、脂肪酶及胰蛋白酶活性均显著降低(P<0.05),ESBM10组肠道脂肪酶及胰蛋白酶活性显著提高(P<0.05)。
表6 酶解豆粕替代鱼粉对中华鳖肠道消化酶活性的影响

Table 6 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on intestinal digestive enzyme activities of Pelodiscus sinensis

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
淀粉酶Amylase/(U/g prot) 0.84±0.04a 0.54±0.02b 0.88±0.07a 0.90±0.02a 0.97±0.07a
脂肪酶Lipase/(U/g prot) 19.94±1.29c 10.77±0.50d 31.56±1.06b 35.35±1.10a 21.89±0.94c
胰蛋白酶Trypsin/(U/mg prot) 54.08±1.65c 39.74±1.01d 70.77±1.26a 74.11±0.27a 60.67±2.79b
与ESBM10组相比,ESBM5组肠道脂肪酶活性显著降低(P<0.05),ESBM15组肠道脂肪酶及胰蛋白酶活性显著降低(P<0.05)。

2.4 酶解豆粕替代鱼粉对中华鳖肌肉抗氧化指标的影响

表7可知,与ESBM0组相比,SBM10组中华鳖肌肉CAT活性、GSH含量及GRAC显著降低(P<0.05),ESBM10组肌肉CAT活性及GSH含量显著提高(P<0.05)。
表7 酶解豆粕替代鱼粉对中华鳖肌肉抗氧化指标的影响

Table 7 Effects of replacing fishmeal with enzymatically hydrolyzed soybean meal on antioxidant indices in muscle of Pelodiscus sinensis

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
过氧化氢酶CAT/(U/mg prot) 11.74±0.58c 9.46±0.14d 12.27±0.40bc 14.03±0.35a 13.21±0.04ab
还原型谷胱甘肽
GSH/(μmol/g prot)
139.54±4.84b 91.84±10.99c 152.33±8.60b 204.56±5.85a 186.85±9.67a
谷胱甘肽还原酶活性系数GRAC 3.78±0.38ab 2.83±0.05c 4.00±0.18ab 4.49±0.08a 3.69±0.24b
与ESBM10组相比,ESBM5组中华鳖肌肉CAT活性及GSH含量显著降低(P<0.05),ESBM15组肌肉GRAC显著降低(P<0.05)。

2.5 酶解豆粕替代鱼粉对中华鳖肌肉氨基酸组成的影响

表8可知,中华鳖肌肉中共检测出17种氨基酸,包括9种必需氨基酸和8种非必需氨基酸,其中谷氨酸和天冬氨酸含量较高。与ESBM0组相比,SBM10组肌肉中谷氨酸、天冬氨酸、赖氨酸、亮氨酸、缬氨酸、丝氨酸、酪氨酸、胱氨酸、总氨基酸、总必需氨基酸及总呈味氨基酸含量均显著降低(P<0.05),ESBM10组谷氨酸、赖氨酸、亮氨酸、苏氨酸、蛋氨酸、总氨基酸、总必需氨基酸及总呈味氨基酸含量显著提高(P<0.05)。
表8 酶解豆粕替代鱼粉对中华鳖肌肉氨基酸组成的影响(干物质基础)

Table 8 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on muscle amino acid profile of Pelodiscus sinensis (DM basis) %

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
谷氨酸Glutamic acid 9.25±0.06b 8.74±0.04d 9.06±0.03c 9.41±0.02a 9.36±0.04ab
天冬氨酸Aspartic acid 8.30±0.11a 7.19±0.06c 7.74±0.08b 8.54±0.16a 7.87±0.06b
赖氨酸Lysine 5.91±0.05b 4.77±0.00d 5.57±0.16c 6.25±0.10a 5.80±0.10bc
异亮氨酸Isoleucine 4.93±0.02 4.93±0.01 4.89±0.02 4.91±0.02 4.90±0.02
亮氨酸Leucine 4.47±0.16b 3.99±0.03c 4.59±0.22b 5.42±0.02a 5.54±0.08a
缬氨酸Valine 4.46±0.02a 3.68±0.02c 4.33±0.08ab 4.46±0.02a 4.24±0.12b
丙氨酸Alanine 4.43±0.19 4.70±0.02 4.38±0.12 4.45±0.17 4.46±0.20
甘氨酸Glycine 4.01±0.02 4.01±0.01 4.01±0.01 3.99±0.01 4.01±0.01
精氨酸Arginine 3.53±0.09 3.49±0.08 3.73±0.06 3.67±0.06 3.60±0.09
苯丙氨酸Phenylalanine 3.10±0.01 3.10±0.02 3.09±0.01 3.09±0.03 3.07±0.02
苏氨酸Threonine 2.68±0.06c 2.66±0.13c 2.64±0.02c 3.62±0.11a 3.16±0.11b
丝氨酸Serine 2.66±0.12a 2.24±0.06b 2.93±0.08a 2.68±0.03a 2.95±0.11a
脯氨酸Proline 2.70±0.04 2.62±0.02 2.62±0.00 2.59±0.04 2.66±0.04
酪氨酸Tyrosine 2.69±0.05ab 2.03±0.08c 2.53±0.12b 2.84±0.04a 2.58±0.08ab
蛋氨酸Methionine 2.01±0.03b 2.12±0.08ab 2.16±0.09ab 2.24±0.03a 1.97±0.05b
组氨酸Histidine 1.66±0.08 1.54±0.05 1.63±0.00 1.59±0.05 1.54±0.07
胱氨酸Cystine 1.16±0.08ab 0.71±0.01c 0.86±0.04c 1.29±0.04a 1.05±0.04b
总氨基酸TAA 67.94±0.47bc 62.52±0.43d 66.77±0.24c 71.04±0.67a 68.77±0.09b
总必需氨基酸TEAA 32.75±0.29c 28.16±0.20e 30.47±0.27d 35.26±0.31a 33.84±0.17b
总呈味氨基酸TDAA 34.03±0.38bc 32.16±0.20d 33.40±0.06c 35.28±0.42a 34.46±0.16ab
与ESBM10组相比,ESBM5组肌肉中谷氨酸、天冬氨酸、赖氨酸、亮氨酸、苏氨酸、酪氨酸、胱氨酸、总氨基酸、总必需氨基酸及总呈味氨基酸含量显著降低(P<0.05),ESBM15组天冬氨酸、赖氨酸、缬氨酸、苏氨酸、蛋氨酸、胱氨酸、总氨基酸及总必需氨基酸含量显著降低(P<0.05)。

2.6 酶解豆粕替代鱼粉对中华鳖肌肉质构的影响

表9可知,与ESBM0组相比,SBM10组中华鳖肌肉硬度、黏附性及胶黏性显著升高(P<0.05),肌肉弹性显著降低(P<0.05);ESBM10组肌肉硬度、黏附性、胶黏性及咀嚼性显著降低(P<0.05)。
表9 酶解豆粕替代鱼粉对中华鳖肌肉质构的影响

Table 9 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on muscle texture of Pelodiscus sinensis

项目
Items
组别Groups
ESBM0 SBM10 ESBM5 ESBM10 ESBM15
硬度Hardness/g 19.80±0.89b 29.33±1.25a 18.06±0.15b 8.10±0.82d 13.77±1.27c
黏附性Adhesiveness/(g·mm) 0.14±0.01b 0.17±0.00a 0.13±0.00bc 0.10±0.01d 0.11±0.01cd
内聚性Cohesiveness 0.36±0.05 0.35±0.05 0.37±0.03 0.49±0.05 0.46±0.02
弹性Springiness/mm 1.22±0.13a 0.80±0.03c 1.03±0.04abc 1.13±0.08ab 0.97±0.05bc
胶黏性Gumminess/g 7.41±0.27b 10.97±1.41a 6.28±0.62b 3.71±0.67c 6.50±0.52b
咀嚼性Chewiness/g 8.88±0.75a 8.29±0.62a 6.61±0.22b 3.73±0.16c 6.41±0.27b
与ESBM10组相比,ESBM5组中华鳖肌肉硬度、黏附性、胶黏性及咀嚼性显著升高(P<0.05),ESBM15组肌肉硬度、胶黏性及咀嚼性显著升高(P<0.05)。

2.7 酶解豆粕替代鱼粉对中华鳖肌肉组织结构的影响

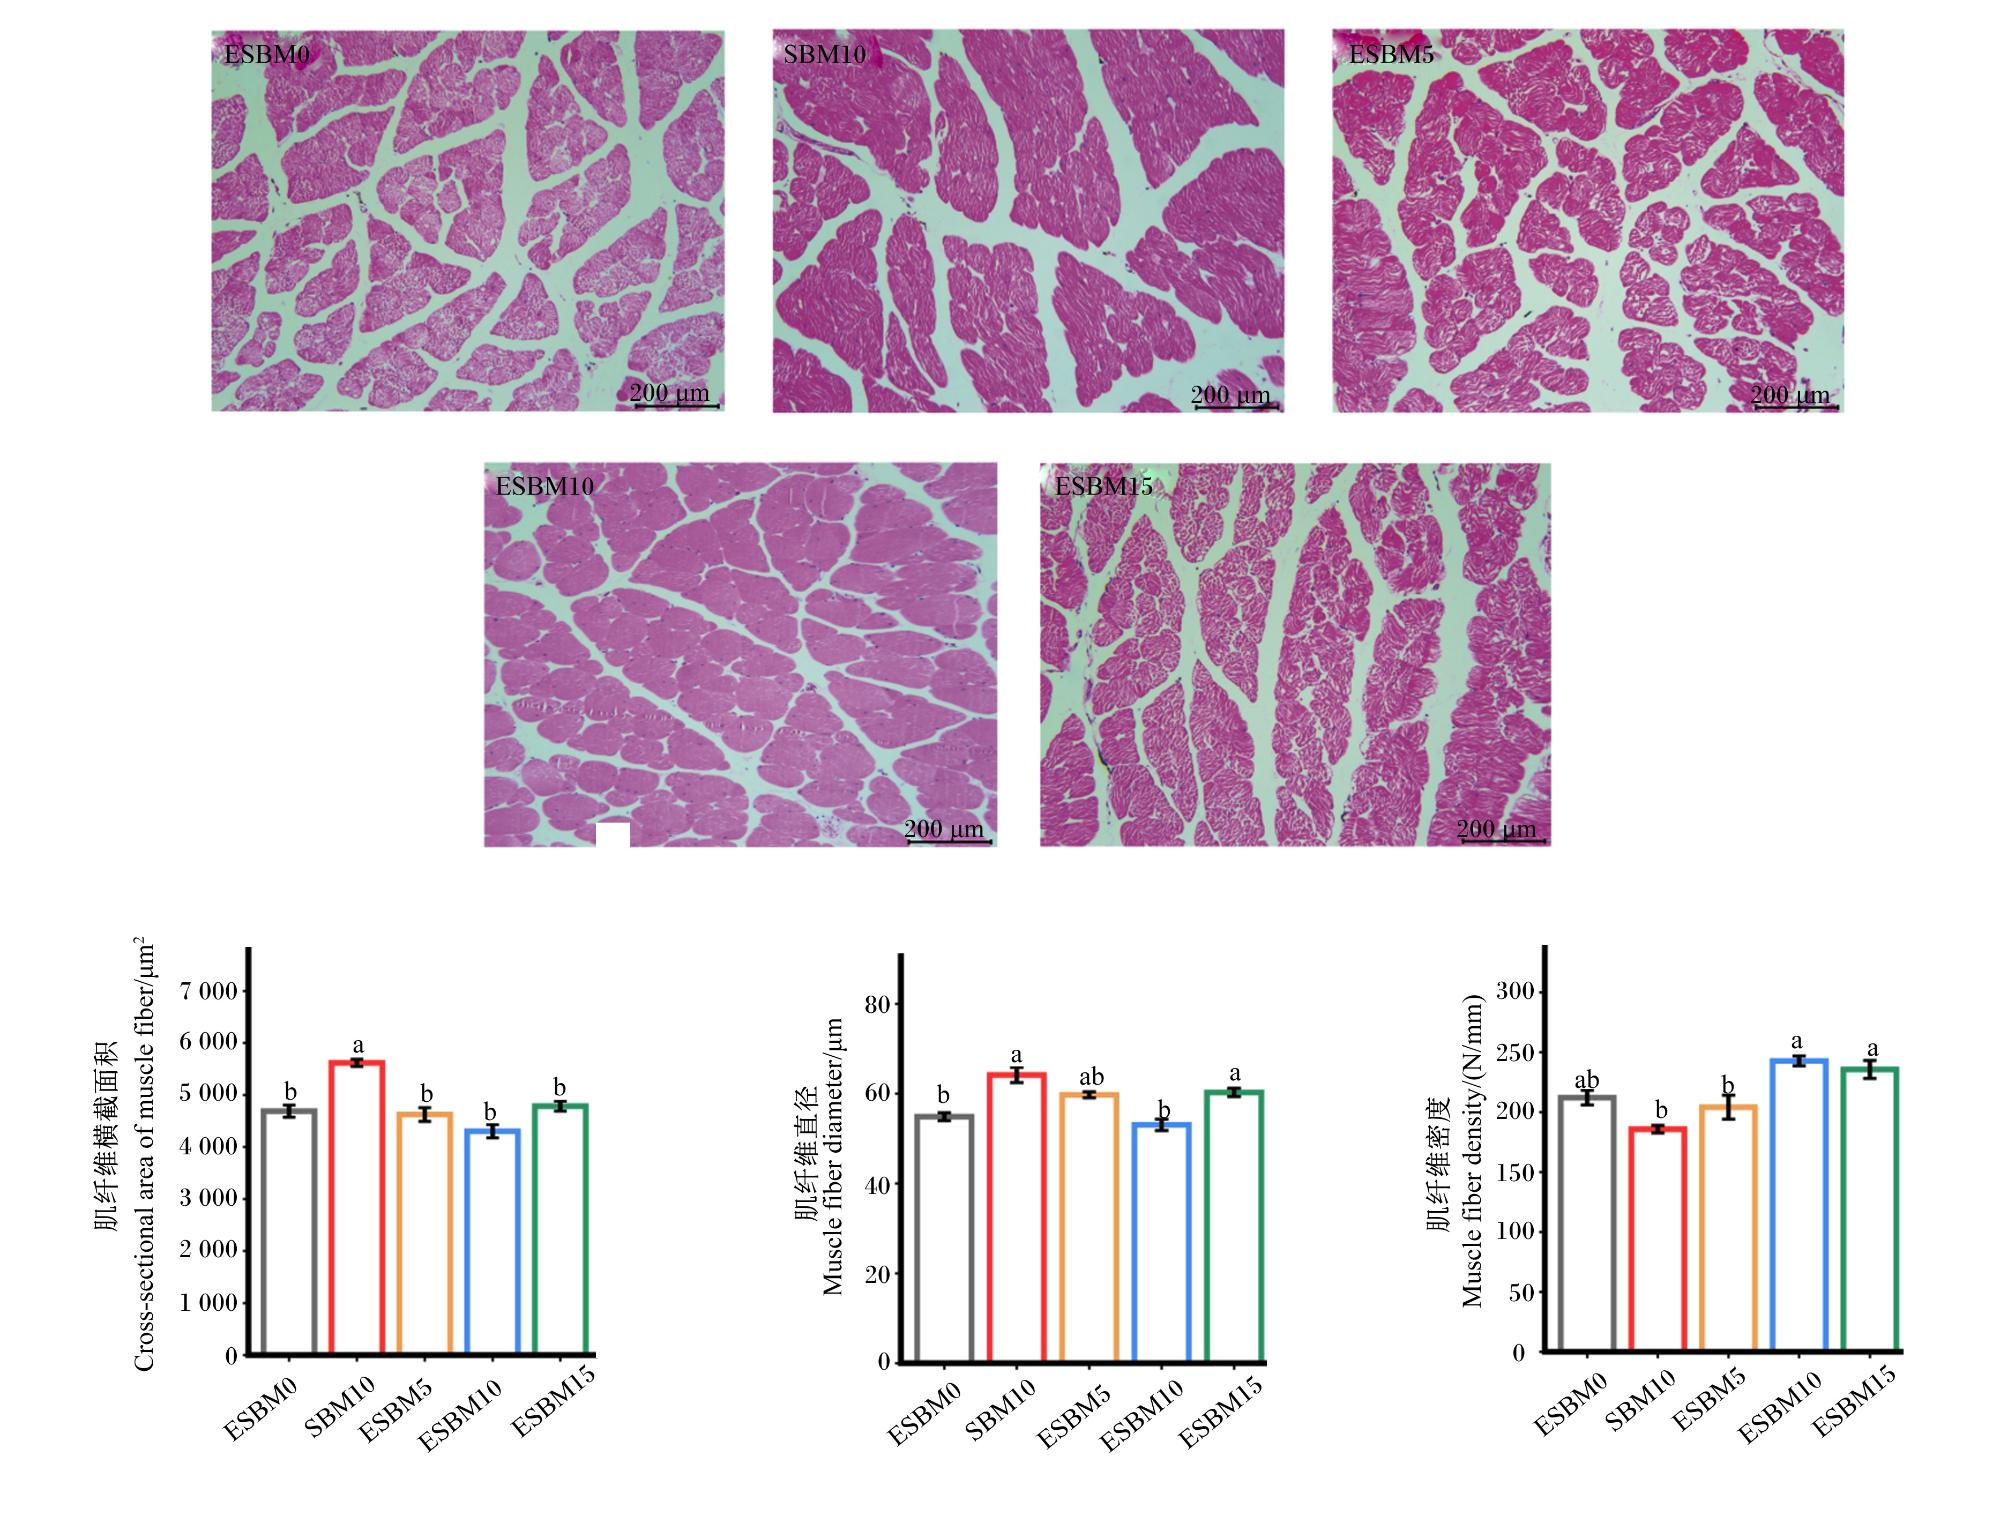
图1可知,与ESBM0组相比,SBM10组肌纤维横截面积及直径显著升高(P<0.05),ESBM10组肌纤维横截面积、直径及密度无显著变化(P>0.05)。
图1 酶解豆粕替代鱼粉对中华鳖肌肉组织结构的影响

ESBM0:ESBM0组 ESBM0 group;SBM10:SBM10组 SBM10 group;ESBM5:ESBM5组 ESBM5 group;ESBM10:ESBM10组 ESBM10 group;ESBM15:ESBM15组 ESBM15 group。下图同 the same as below
数据柱形标注不同小写字母表示差异显著(P<0.05),相同字母表示差异不显著。下图同。Value columns with different small letters mean significant difference (P<0.05), while with the same letter superscripts mean no significant difference (P>0.05). The same as below.

Fig.1 Effect of replacing fish meal with enzymatically hydrolyzed soybean meal on muscle tissue structure of Pelodiscus sinensis

与ESBM10组相比,ESBM5组肌纤维密度显著降低(P<0.05),ESBM15组肌纤维直径显著升高(P<0.05)。

2.8 酶解豆粕替代鱼粉对中华鳖肌肉生长发育相关基因表达的影响

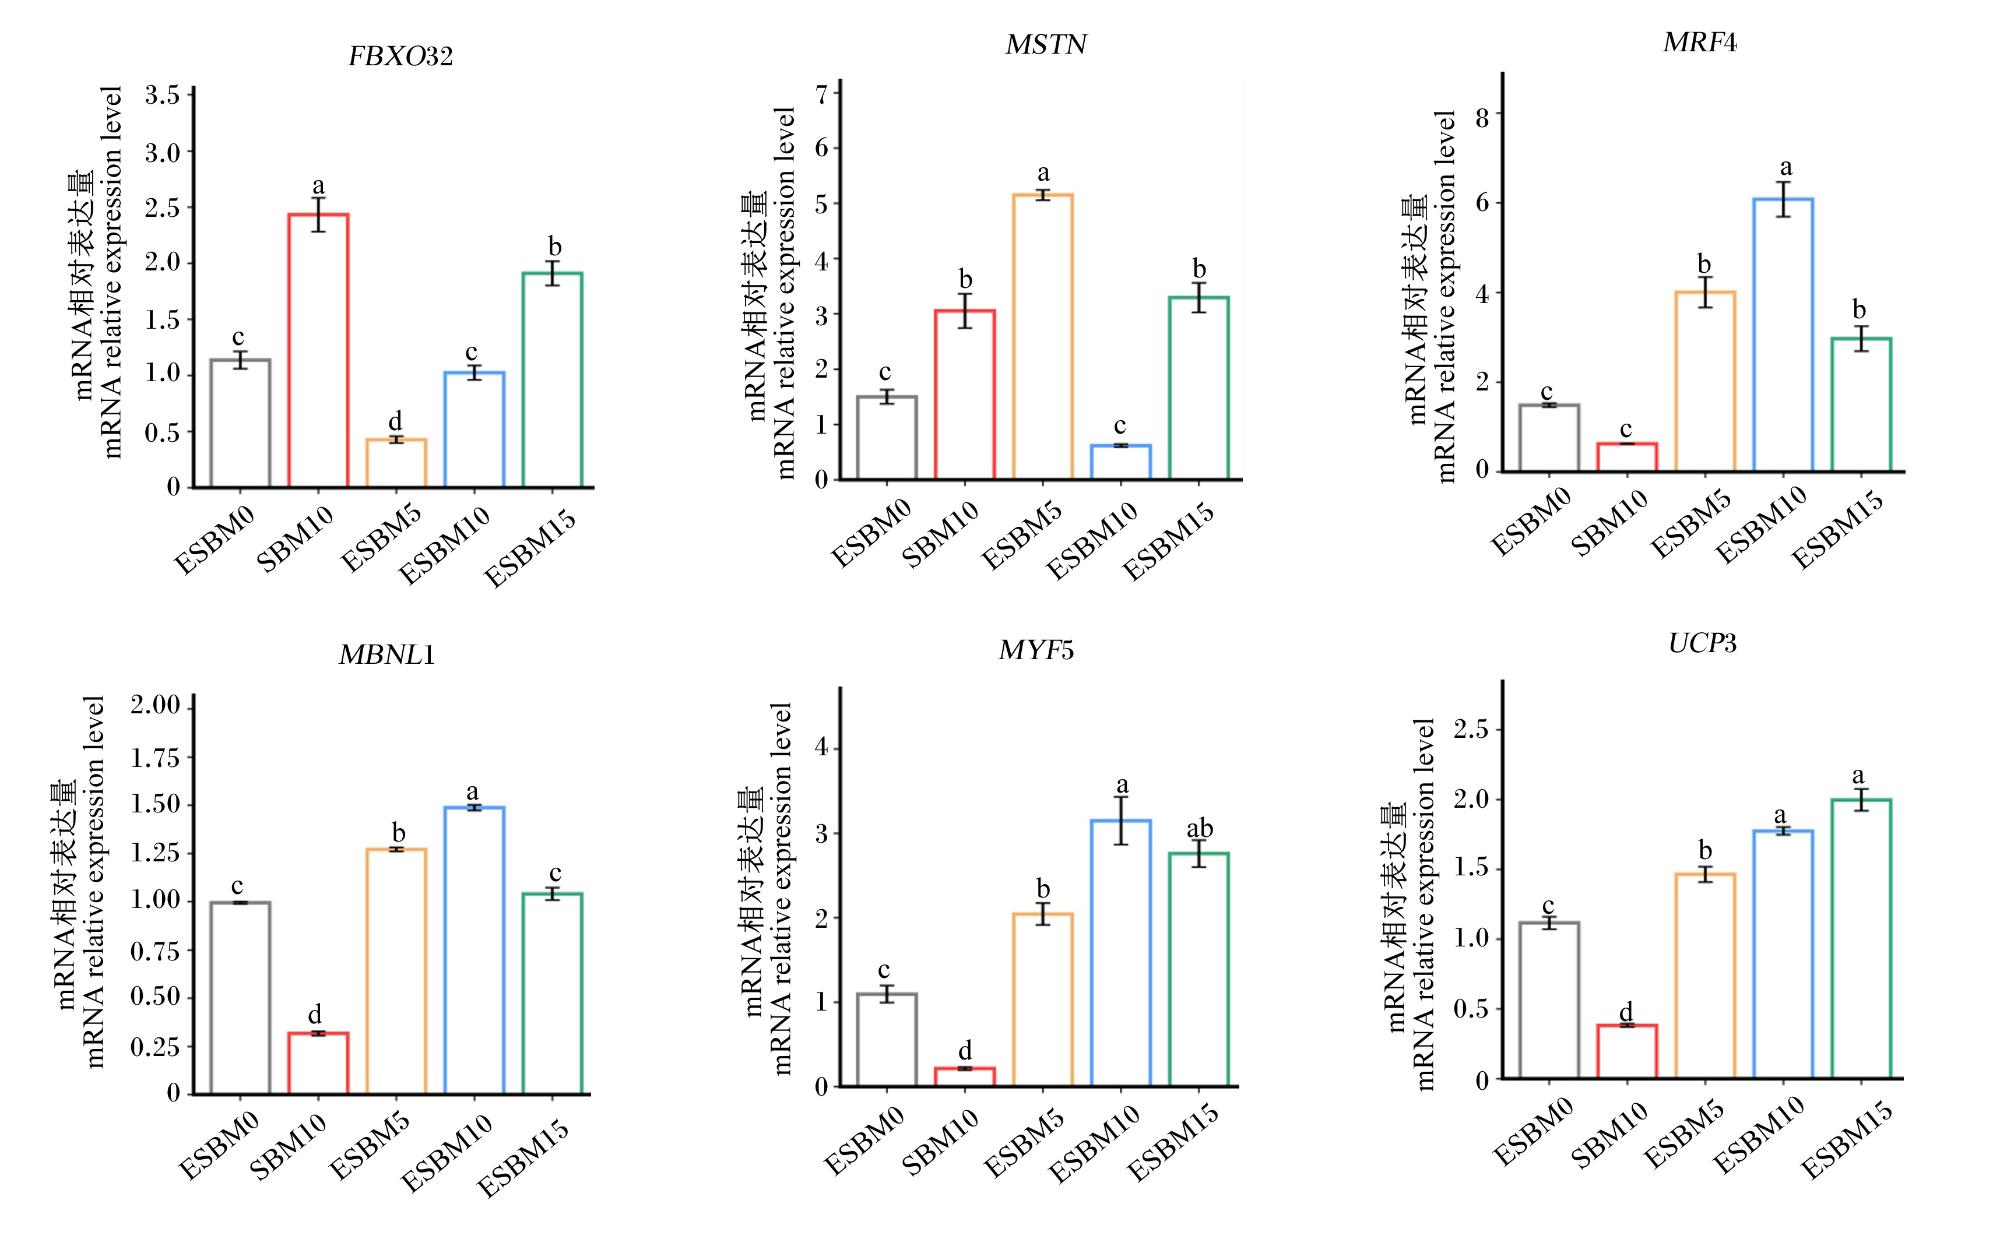
图2可知,与ESBM0组相比,SBM10组中华鳖肌肉F-box蛋白32(FBXO32)及肌肉生长抑制素(MSTN)mRNA相对表达量显著上调(P<0.05),肌肉肌盲样剪接调节蛋白1(MBNL1)、肌源性因子5(MYF5)及解偶联蛋白3(UCP3)mRNA相对表达量显著下调(P<0.05);ESBM10组肌肉肌细胞生成素4(MRF4)、MBNL1、MYF5及UCP3 mRNA相对表达量显著上调(P<0.05)。
图2 酶解豆粕替代鱼粉对中华鳖肌肉生长发育相关基因表达的影响

FBXO32:F-box蛋白32 F-box protein 32;MSTN:肌肉生长抑制素 myostatin;MRF4:肌细胞生成素4 muscle regulatory factor 4;MBNL1:肌盲样剪接调节蛋白1 muscleblind-like protein 1;MYF5:肌源性因子5 myogenic factor 5;UCP3:解偶联蛋白3 uncoupling protein 3。

Fig.2 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on expression of muscle growth and development-related genes of Pelodiscus sinensis

与ESBM10组相比,ESBM5组中华鳖肌肉FBXO32、MRF4、MBNL1、MYF5及UCP3 mRNA相对表达量显著下调(P<0.05),肌肉MSTN mRNA相对表达量显著上调(P<0.05);ESBM15组肌肉MRF4及MBNL1 mRNA相对表达量显著下调(P<0.05),肌肉FBXO32及MSTN mRNA相对表达量显著上调(P<0.05)。

2.9 酶解豆粕替代鱼粉对中华鳖肌肉蛋白质代谢相关基因表达的影响

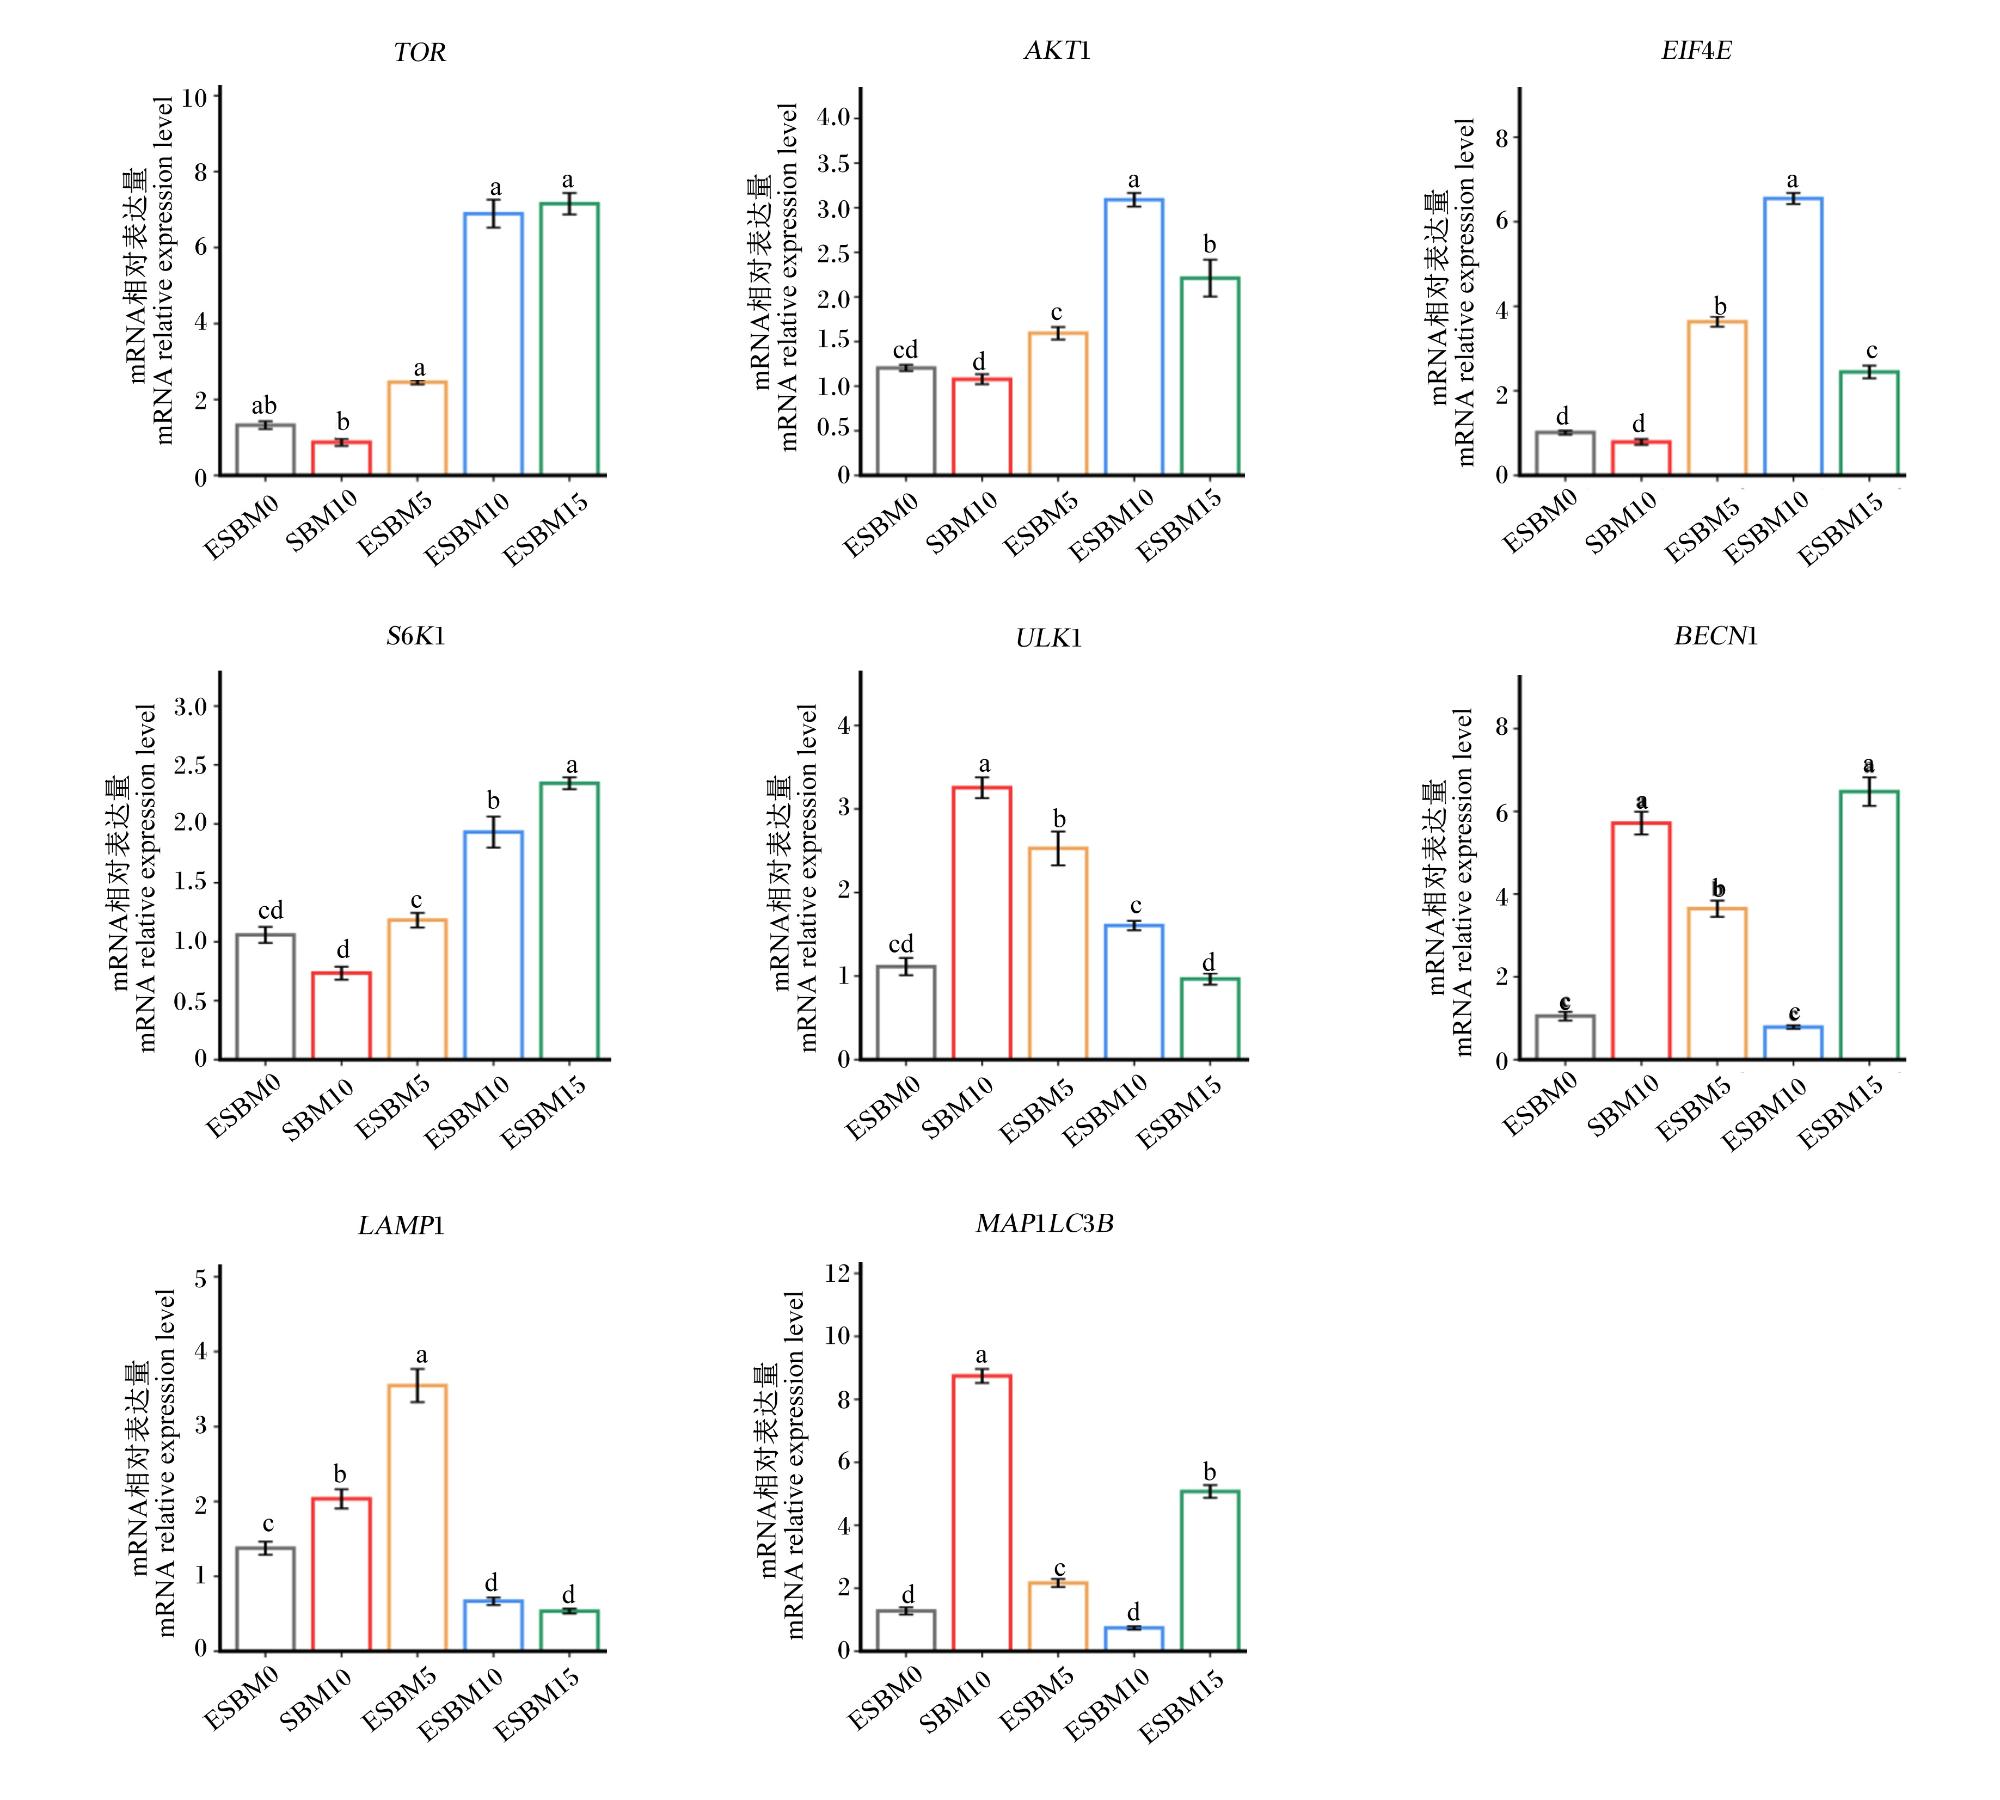
图3可知,与ESBM0组相比,SBM10组肌肉雷帕霉素靶蛋白(TOR)、蛋白激酶B1(AKT1)、真核翻译起始因子4E(EIF4E)及核糖体蛋白S6激酶1(S6K1)mRNA相对表达量无显著变化(P>0.05),肌肉UNC-51样激酶1(ULK1)、自噬相关基因1(BECN1)、微管相关蛋白1轻链3β(MAP1LC3B)及溶酶体相关膜蛋白1(LAMP1)mRNA相对表达量显著上调(P<0.05);ESBM10组肌肉AKT1、EIF4ES6K1 mRNA相对表达量显著上调(P<0.05),肌肉LAMP1 mRNA相对表达量显著下调(P<0.05)。
图3 酶解豆粕替代鱼粉对中华鳖肌肉蛋白质代谢相关基因表达的影响

TOR:雷帕霉素靶蛋白 target of rapamycin;AKT1:蛋白激酶B1 protein kinase B1;EIF4E:真核翻译起始因子4E eukaryotic initiation factor 4E;S6K1:核糖体蛋白S6激酶1 ribosomal S6 kinase 1;ULK1:UNC-51样激酶1 UNC-51-like kinase 1;BECN1:自噬相关基因1 beclin-1;LAMP1:溶酶体相关膜蛋白1 lysosome-associated membrane protein 1;MAP1LC3B:微管相关蛋白1轻链3β microtubule-associated protein 1 light chain 3 beta。

Fig.3 Effects of replacing fish meal with enzymatically hydrolyzed soybean meal on expression of muscle protein metabolism-related genes of Pelodiscus sinensis

与ESBM10组相比,ESBM5组肌肉AKT1、EIF4ES6K1 mRNA相对表达量显著下调(P<0.05),肌肉ULK1、BECN1、MAP1LC3BLAMP1 mRNA相对表达量显著上调(P<0.05);ESBM15组肌肉AKT1、EIF4EULK1 mRNA相对表达量显著下调(P<0.05),肌肉S6K1、BECN1及MAP1LC3B mRNA相对表达量显著上调(P<0.05)。

3 讨论

3.1 酶解豆粕替代鱼粉对中华鳖生长性能和蛋白质沉积率的影响

豆粕中的抗营养因子会抑制水产动物生长,常见包括:1)胰蛋白酶抑制剂,能与动物肠道内的胰蛋白酶结合并抑制其活性,降低蛋白质消化利用率,导致生长迟缓[11];2)植物凝集素,能与动物肠黏膜上皮细胞糖蛋白结合,破坏肠道结构完整性,干扰营养吸收,并可能诱发肠道炎症,从而抑制生长[12];3)非淀粉多糖,会提高动物肠道食糜黏度,抑制营养物质与消化酶结合,引起肠道菌群紊乱,损害机体消化功能[13]。豆粕酶解处理可通过特定酶的作用,断裂抗营养因子中的关键化学键,如肽键、糖苷键,降低其对营养物质吸收的干扰,有效消除抗营养因子[14]。本试验结果表明,与ESBM0组相比,SBM10组中华鳖生长性能、蛋白质效率及沉积率无显著变化,ESBM10组生长性能、蛋白质效率及沉积率显著提高,该结果与斑点叉尾鮰(Ictalurus punctatus)[15]及美洲鳗幼鳗(Anguilla rostrata)[16]的研究结果相似。这可能是由于酶解处理消除了豆粕中的抗营养因子,处理后的豆粕消化、吸收效率和营养物质利用率提高,饲料营养转化效率提高[17]。此外,豆粕经酶解处理后,蛋白酶催化大分子蛋白质降解为小肽和氨基酸,这些小分子化合物更易被肠上皮细胞吸收,中华鳖稚幼鳖消化系统尚未发育完全,对酶解豆粕中小分子肽和游离氨基酸的利用率显著高于鱼粉中的大分子蛋白质,使用酶解豆粕部分代替鱼粉可以提高蛋白质吸收效率,改善生长性能[18]。酶解过程中同时会产生生物活性肽,部分生物活性肽(如抗菌肽、促生长肽)不仅可作为营养物质,还能增强肠道屏障功能、抑制致病菌生长,保障营养物质高效吸收;同时,这类活性肽能调控生长激素分泌、激活蛋白质合成相关酶,促进细胞增殖与组织生长,最终提高生长性能[19]
进一步研究发现,与ESBM10组相比,ESBM15组中华鳖生长性能、蛋白质效率及沉积率显著降低。该结果可能与酶解处理后残留的抗营养因子有关。在高替代水平下,残留的抗营养因子会阻碍蛋白质的消化吸收,从而限制中华鳖的生长[20]。因此,以酶解豆粕替代10个百分点鱼粉时对中华鳖稚幼鳖的促生长效果最佳。

3.2 酶解豆粕替代鱼粉对中华鳖全鳖营养成分的影响

中华鳖全鳖粗脂肪、粗蛋白质与水分含量是表征机体营养积累状况的重要指标。本研究显示,与ESBM0组相比,SBM10组全鳖粗蛋白质含量显著降低,ESBM10组全鳖粗蛋白质含量显著提高,这与在大口黑鲈[21]中的研究结果相似。这可能是由于豆粕中含有抗营养因子,抑制机体对蛋白质的消化和吸收效率,导致全鳖粗蛋白质含量下降,豆粕经酶解处理后可降解抗营养因子并将大分子蛋白质转化为小分子肽和游离氨基酸,提升机体蛋白质沉积,全鳖粗蛋白质含量提高[22]。与ESBM10组相比,ESBM5组全鳖粗蛋白质含量显著降低,这可能是由于酶解豆粕替代鱼粉比例较低时,饲料中易被吸收氮源占比减少,稚幼鳖蛋白质消化吸收与沉积不足,导致全鳖粗蛋白质含量下降[23]
与ESBM0组相比,SBM10组全鳖粗脂肪含量显著降低,ESBM10组全鳖粗脂肪含量显著提高,这可能与SBM10组中华鳖肠道脂肪酶活性显著降低有关,脂肪酶是机体脂肪消化的关键酶,其活性降低会影响脂肪的正常消化过程,导致可供机体吸收的游离脂肪酸和甘油等产物减少,从而限制了体脂沉积,最终表现为全鳖粗脂肪含量下降,而ESBM10组中华鳖肠道脂肪酶活性显著提高,其脂肪消化功能得到改善,为机体脂质合成与沉积提供了更多的原料,促进全鳖粗脂肪含量提高[24-25]。与ESBM10组相比,ESBM5组和ESBM15组全鳖粗脂肪含量均显著降低,这可能是由于酶解豆粕替代比例过高或过低时,中华鳖肠道脂肪酶活性降低,体脂沉积量减少,导致全鳖粗脂肪含量降低[24-25]

3.3 酶解豆粕替代鱼粉对中华鳖肠道消化酶活性的影响

肠道消化酶活性是衡量动物营养代谢与肠道健康的关键指标[26]。本研究结果表明,与ESBM0组相比,SBM10组肠道消化酶活性均显著降低,这与在真鲷(Pagrus major)[27]中的研究结果相似,而ESBM10组脂肪酶及胰蛋白酶活性显著升高,在大口黑鲈(Micropterus salmoides)[8]的研究中观察到类似的结果,这表明豆粕经酶解后替代鱼粉能提高中华鳖肠道的消化功能。与ESBM10组相比,ESBM5组脂肪酶活性显著降低,ESBM15组脂肪酶及胰蛋白酶活性显著降低,这与在珍珠龙胆石斑鱼(Epinephelus fuscoguttatus×Epinephelus lanceolatus)中的研究结果相似[9],这表明当酶解豆粕替代比例过高或过低时会对中华鳖肠道消化功能产生抑制作用,替代比例为10个百分点时效果最佳。

3.4 酶解豆粕替代鱼粉对中华鳖肌肉抗氧化指标的影响

肌肉中CAT活性、GSH含量及GRAC是评估其抗氧化功能与氧化应激水平的核心指标。本研究结果表明,与ESBM0组相比,SBM10组中华鳖肌肉CAT活性、GSH含量及GRAC均显著降低,ESBM10组CAT活性、GSH含量显著升高,这与在草鱼(Ctenopharyngodon idella)[28]中的研究结果相似。这可能是由于豆粕中的抗营养因子会干扰氨基酸吸收、增加活性氧,降低其肌肉抗氧化功能[29];豆粕经酶解后可降解抗营养因子、生成易被吸收的小分子肽与氨基酸,为抗氧化物质合成提供原料,同时辅助清除活性氧,提高肌肉抗氧化功能[30]。进一步研究表明,与ESBM10组相比,ESBM5组中华鳖肌肉CAT活性、GSH含量显著降低。这可能是由于酶解豆粕替代鱼粉比例较低时,中华鳖摄入的酶解小分子肽及游离氨基酸减少,导致肌肉抗氧化物质合成原料不足,其肌肉抗氧化功能降低[30]

3.5 酶解豆粕替代鱼粉对中华鳖肌肉氨基酸组成的影响

氨基酸是构成蛋白质的基本单位,其组成和含量是评价水生动物肌肉营养品质的重要指标[31]。赖氨酸、苏氨酸、缬氨酸及亮氨酸作为必需氨基酸,通过提供核心原料、启动合成信号、保障沉积效率及维持机体健康的协同作用,保障肌肉蛋白质的高效合成[32-33]。谷氨酸、天冬氨酸、丝氨酸及酪氨酸作为主要的呈味氨基酸,其共同奠定和塑造肌肉组织的基础风味特征,为肌肉提供鲜味与甜味[34];胱氨酸通过其形成的二硫键稳定肌肉结构蛋白的构象,是决定肌肉质构特性的关键结构基础[35]。本研究结果表明,与ESBM0组相比,SBM10组肌肉中谷氨酸、天冬氨酸、赖氨酸、亮氨酸、缬氨酸、丝氨酸、酪氨酸、胱氨酸、总氨基酸、总必需氨基酸及总呈味氨基酸含量显著降低,ESBM10组谷氨酸、赖氨酸、亮氨酸、苏氨酸、蛋氨酸、总氨基酸、总必需氨基酸及总呈味氨基酸含量显著提高。这可能是由于豆粕中的抗营养因子如胰蛋白酶抑制剂通过抑制肠道内源蛋白酶活性并损害肠道黏膜完整性,从而降低蛋白质的消化率与氨基酸的吸收效率,导致中华鳖肌肉中多种必需氨基酸与呈味氨基酸含量显著降低,使其肌肉蛋白质合成效率下降及风味物质含量显著降低[36-37]。豆粕经酶解处理后,有效消除抗营养因子并将其大分子蛋白质降解为更易吸收的小肽和氨基酸,显著提高肠道对氨基酸的吸收效率,促进中华鳖肌肉中多种必需氨基酸与呈味氨基酸的沉积,提高其肌肉蛋白质合成效率及风味物质含量[17,38]。进一步研究表明,与ESBM10组相比,ESBM5组肌肉中谷氨酸、天冬氨酸、赖氨酸、亮氨酸、苏氨酸、酪氨酸、胱氨酸、总氨基酸、总必需氨基酸及总呈味氨基酸含量显著降低,ESBM15组天冬氨酸、赖氨酸、缬氨酸、苏氨酸、蛋氨酸、胱氨酸、总氨基酸及总必需氨基酸含量显著降低。当酶解豆粕替代比例降低时,可能饲料中易被吸收的小肽和游离氨基酸量减少,肠道对氨基酸吸收效率降低,降低中华鳖肌肉蛋白质合成效率及风味物质含量[17]。当酶解豆粕替代比例过高时,其中残留的抗营养因子如抗原蛋白或寡糖将产生累积效应,干扰肠道对蛋白质的消化与氨基酸的特异性转运,降低中华鳖肌肉中多种必需氨基酸与呈味氨基酸的吸收效率,导致中华鳖肌肉蛋白质合成效率及风味物质含量降低[36-37,39]

3.6 酶解豆粕替代鱼粉对中华鳖肌肉质构的影响

肌肉质构是反映肌肉物理特性与食用品质的关键指标,包括硬度、黏附性、内聚性、弹性、胶黏性及咀嚼性[40]。研究表明,硬度反映肌肉软硬程度,与肌纤维生长和直径大小呈负相关;黏附性反映肌肉咀嚼时与口腔表面的黏附程度,其值越高表明肌肉与口腔的黏度越大;内聚性反映肌肉内部结构的紧密性与稳定性;弹性反映肌肉形变后的恢复能力,与肌动蛋白、肌球蛋白及弹性蛋白含量正相关;胶黏性反映肌肉的黏稠度和韧性,是硬度与内聚性的乘积;咀嚼性反映将固态样品咀嚼成吞咽时稳定态所需能量,数值上用胶黏性与弹性的乘积表示[41-42]。本研究结果表明,与ESBM0组相比,SBM10组中华鳖肌肉硬度、黏附性显著升高,弹性显著降低;ESBM10组硬度、黏附性及咀嚼性显著降低。这可能是由于豆粕中含有的胰蛋白酶抑制剂等抗营养因子,降低了蛋白质的消化和吸收效率,导致肌肉蛋白质沉积不足而结缔组织相对发育,从而使肌肉硬度升高,弹性下降[43];酶解处理有效消除了豆粕中的抗营养因子,并将其蛋白质降解为更易吸收的小肽和氨基酸,改善了蛋白质的整体利用效率,促进了肌原纤维蛋白质的正常沉积,使其肌肉硬度、黏附性及咀嚼性降低[44]。进一步研究表明,与ESBM10组相比,ESBM5组和ESBM15组中华鳖肌肉硬度及咀嚼性显著升高。这可能是由于酶解豆粕替代比例减少导致饲料中小肽及氨基酸等高效氮源相对缺乏,影响了肌原纤维蛋白的优化沉积,致使其肌肉硬度和咀嚼性升高[44];当酶解豆粕替代比例过高时,其残留的抗营养因子累积会导致蛋白质沉积效率降低与肌纤维结构发育异常,最终表现为肌肉硬度升高。

3.7 酶解豆粕替代鱼粉对中华鳖肌肉组织结构的影响

肌肉组织学特征是决定水产动物肉质的根本因素。本研究结果表明,与ESBM0组相比,SBM10组肌纤维横截面积及直径显著升高,ESBM10组肌纤维横截面积及直径无显著变化。肌纤维作为肌肉的基本功能单位,其直径与横截面积是决定肉质嫩度的核心因素,较粗的肌纤维会破坏肌纤维膜与肌原纤维的比例平衡,显著降低蛋白酶对肌原纤维蛋白的分解效率,进而导致肉质硬度升高,肉品质下降[45-46]。进一步研究表明,与ESBM10组相比,ESBM5组肌纤维密度显著降低,ESBM15组肌纤维直径显著升高。肌纤维密度降低体现为单位面积肌纤维数量减少且纤维间结缔组织分布失衡,导致纤维间弹性不足使肉质弹性降低,同时造成纤维稀疏,肉质松散,肉品质下降[47]

3.8 酶解豆粕替代鱼粉对中华鳖肌肉生长发育相关基因表达的影响

肌肉生长发育基因负责调控肌肉的发育、生长、维持与修复。研究表明,FBXO32基因是调控肌肉蛋白质降解与萎缩的关键基因,同时参与肌肉发育、再生及代谢平衡调节[48-49]MSTN基因为肌肉发育负调控关键基因,通过抑制肌卫星细胞增殖及肌纤维生长限制肌肉量[50]MRF4基因是肌细胞生成因子,核心调控肌纤维分化成熟,同时参与肌卫星细胞激活与肌肉再生[51]MBNL1基因通过调控肌肉相关基因RNA剪接,保障肌纤维分化成熟,其功能异常会导致肌肉发育障碍[52]MYF5基因为肌肉祖细胞定向分化为肌细胞的早期关键调控因子,启动肌发生程序并参与肌肉发育与再生[53]UCP3基因通过调控骨骼肌线粒体能量代谢与氧化应激,维持肌细胞稳态以支持肌肉发育[54]。本研究结果表明,与ESBM0组相比,SBM10组肌肉生长发育相关基因MBNL1、MYF5及UCP3表达显著下调,ESBM10组肌肉生长发育相关基因MRF4、MBNL1、MYF5及UCP3表达显著上调,这可能是由于豆粕中的抗营养因子如胰蛋白酶抑制剂、植物凝集素等,会干扰机体对蛋白质的消化吸收[55],造成体内必需氨基酸的缺乏,影响mTOR等生长相关信号通路的正常激活,从而抑制肌肉生长发育基因的表达[56-57]。这一结果与在凡纳滨对虾(Litopenaeus vannamei)[58]和褐牙鲆(Paralichthys olivaceus)[59]中的研究结果相符。豆粕经酶解处理后,抗营养因子得到有效降解,其大分子蛋白质被分解为小分子肽与游离氨基酸,显著提高蛋白质消化和吸收效率,从而上调肌肉发育基因[60]。进一步研究表明,与ESBM10组相比,ESBM5组和ESBM15组肌肉生长发育基因MRF4、MBNL1表达显著下调,ESBM5组肌肉生长抑制基因MSTN表达显著上调。这可能是由于酶解豆粕替代比例减少时,饲料中易于消化吸收的小肽和游离氨基酸含量显著降低,这种高效氮源的减少,不仅限制了蛋白质合成的直接原料,更可能削弱了由小肽作为信号分子所启动的合成代谢信号通路如mTOR通路,特异性下调肌肉发育基因的表达[60-61]。而酶解豆粕过量替代鱼粉时,其残留的抗营养因子可能通过限制合成肌肉蛋白质所需氨基酸的有效供给,抑制了机体的蛋白质合成速率,从而在分子水平上表现为肌肉生长发育相关基因表达下调[39,56]

3.9 酶解豆粕替代鱼粉对中华鳖肌肉蛋白质代谢相关基因表达的影响

TOR基因是肌肉蛋白质合成的核心调控因子,其通过磷酸化下游靶点激活翻译过程,驱动蛋白质合成[62]AKT1基因编码的激酶是介导胰岛素/胰岛素样生长因子-1(IGF-1)等生长信号、通过激活哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)通路来驱动肌肉蛋白质合成的上游关键激酶[63]EIF4E基因编码的帽结合蛋白,是启动肌肉中mRNA翻译并决定其整体速率的关键限速因子[64]。S6K1是mTORC1通路的关键下游激酶,通过磷酸化核糖体蛋白S6直接驱动翻译延伸,促进肌肉蛋白质合成[65]。ULK1是启动肌肉自噬性蛋白质分解的关键激酶,其通过磷酸化下游自噬相关蛋白,直接调控自噬体的形成以介导蛋白质降解[66]BECN1基因通过精确调控自噬体形成,启动并介导肌肉中程序性蛋白质降解的关键步骤[67]MAP1LC3B基因是自噬体形成的核心标记基因,其编码的微管相关蛋白1A/1B轻链3(LC3)通过脂化修饰,直接参与自噬性蛋白降解的执行过程[68]LAMP1基因编码的溶酶体膜蛋白,介导自噬体与溶酶体膜融合,是完成自噬依赖性蛋白降解的必需分子[69]。本试验结果表明,与ESBM0组相比,SBM10组蛋白质合成相关基因TORAKT1、EIF4ES6K1表达无显著变化,蛋白质分解相关基因ULK1、BECN1、MAP1LC3BLAMP1表达显著上调;ESBM10组蛋白质合成基因AKT1、EIF4ES6K1表达显著上调,蛋白质分解基因LAMP1表达显著下调,这与在鲍鱼[10]中的研究结果相似。这可能是由于豆粕中的抗营养因子如胰蛋白酶抑制剂干扰正常消化,诱发代谢应激,抑制蛋白质合成代谢mTOR信号通路,分解代谢增强[70]。酶解处理能有效降解豆粕中抗营养因子,并将部分蛋白质水解为易于吸收、具有生物活性的小肽,改善氨基酸的平衡与利用率,提供促合成代谢信号,从而上调蛋白质合成基因表达并抑制分解基因的表达[60]。与ESBM10组相比,ESBM5组与ESBM15组肌肉蛋白质合成基因AKT1及EIF4E表达显著下调,分解基因BECN1及MAP1LC3B表达显著上调。这可能是由于酶解豆粕替代比例降低导致饲料中小肽和游离氨基酸含量降低,合成代谢信号减弱,抑制蛋白质合成,分解代谢增强[60]。酶解处理无法完全去除豆粕中的抗营养因子,酶解豆粕过量替代鱼粉时,其残留的抗营养因子累积干扰消化吸收并诱发代谢应激,抑制mTOR合成通路,激活蛋白质分解代谢途径[39,70]

4 结论

综上所述,在本试验条件下,中华鳖饲料中酶解豆粕替代鱼粉的比例不超过15个百分点时,可通过提高肌肉抗氧化功能、调控肌肉生长发育及蛋白质代谢相关基因表达、改善肌肉氨基酸组成与肌纤维结构,从而提高中华鳖生长性能、肌肉生长发育水平及肉品质,且在替代10个百分点时效果最佳。
[1]
LIANG Y X, TIAN P, LU Y K, et al. Establishment and population genetic analysis of SNP fingerprinting of Chinese soft-shelled turtle (Pelodiscus sinensis)[J]. Aquaculture Reports, 2024,38:102340.

[2]
中华人民共和国农业农村部渔业渔政管理局, 全国水产技术推广总站,中国水产学会.2025中国渔业统计年鉴[M]. 北京: 中国农业出版社,2025:35.

Bureau of Fisheries and Fishery Administration,Ministry of Agriculture and Rural Affairs of the People’s Republic of China,National Fisheries Technology Extension Center,China Society of Fisheries. 2025 China fishery statistical yearbook[M]. Beijing: China Agriculture Press,2025:35. (in Chinese)

[3]
GONG B, BAO F Y, WANG Y L, et al. Metabonomics study on the effect of traditional Chinese medicines feed addition on growth performance and serum metabolic profile of juvenile Chinese softshell turtle (Pelodiscus sinensis wiegmann)[J]. Aquaculture Reports, 2021,20:100632.

[4]
HUSSAIN S M, BANO A A, ALI S, et al. Substitution of fishmeal:highlights of potential plant protein sources for aquaculture sustainability[J]. Heliyon, 2024, 10(4):e26573.

DOI

[5]
PANG A B, XIN Y, XIE R T, et al. Differential analysis of fish meal substitution with two soybean meals on juvenile pearl gentian grouper[J]. Frontiers in Marine Science, 2023,10:1170033.

[6]
WANG C, ZHANG Y, WEI S Y, et al. Bioconversion of soybean meal into gut microbiota-targeting polysaccharides via fermentation by Bacillus subtilis[J]. Journal of Cleaner Production, 2024,464:142787.

[7]
姜德田, 汪毅, 黄旭雄, 等. 低鱼粉饲料中添加酶解豆粕对凡纳滨对虾生长性能和抗胁迫机能的影响[J]. 水产学报, 2020, 44(6):999-1012.

JIANG D T, WANG Y, HUANG X X, et al. Effect of proteolytic soybean meal in low-fish-meal-diet on growth performance and stress resistance of Litopenaeus vannamei[J]. Journal of Fisheries of China, 2020, 44(6):999-1012. (in Chinese)

[8]
张改改, 李向, 蔡修兵, 等. 酶解豆粕替代鱼粉对大口黑鲈的生长性能、消化酶活性、肝脏功能及代谢的影响[J]. 水生生物学报, 2019, 43(5):1001-1012.

ZHANG G G, LI X, CAI X B, et al. Effects of enzymatic hydrolyzed soybean meal on growth performance,liver function and metabolism of largemouth bass (Micropterus salmoides)[J]. Acta Hydrobiologica Sinica, 2019, 43(5):1001-1012. (in Chinese)

[9]
李学丽, 王际英, 宋志东, 等. 酶解豆粕替代鱼粉对珍珠龙胆石斑鱼幼鱼生长和主要代谢酶活力的影响[J]. 海洋渔业, 2017, 39(5):529-538.

LI X L, WANG J Y, SONG Z D, et al. Effects of fishmeal replacement by hydrolyzed soybean meal on growth,body composition,digestive and metabolic enzyme activities of juvenile Epinephelus fuscoguttatus♀×Epinephelus lanceolatus ♂[J]. Marine Fisheries, 2017, 39(5):529-538. (in Chinese)

[10]
YU X J, LUO K, RAO W X, et al. Effects of replacing dietary fish meal with enzyme-treated soybean meal on growth performance,intestinal microbiota,immunity and mTOR pathway in abalone Haliotis discus hannai[J]. Fish & Shellfish Immunology, 2022,130:9-21.

[11]
WU W L, LIN J G, JIANG W P, et al. Soybean trypsin inhibitor possesses potency against SARS-CoV-2 infection by blocking the host cell surface receptors ACE2,TMPRSS2,and CD147[J]. International Journal of Molecular Sciences, 2025, 26(14):6583.

DOI

[12]
SHEA Z, OGANDO DO GRANJA M, FLETCHER E B, et al. A review of bioactive compound effects from primary legume protein sources in human and animal health[J]. Current Issues in Molecular Biology, 2024, 46(5):4203-4233.

DOI PMID

[13]
CHEN X Y, ZHU L, ZHANG H, et al. A review of endogenous non-starch components in cereal matrix:spatial distribution and mechanisms for inhibiting starch digestion[J]. Critical Reviews in Food Science and Nutrition, 2025, 65(19):3686-3701.

DOI

[14]
YANG H, QU Y Z, LI J T, et al. Improvement of the protein quality and degradation of allergens in soybean meal by combination fermentation and enzymatic hydrolysis[J]. LWT, 2020,128:109442.

[15]
XUQUAN X, WEILAN Z, RUIXUE D, et al. Study of enzyme-hydrolyzed soybean replacing fish meal and/or chicken meal on the growth of channel catfish (Ictalurus punctatus)[J]. Aquaculture Reports, 2022,27:101344.

[16]
XU Y C, WU C Y, WANG P, et al. Effects of dietary inclusion of enzymatically hydrolyzed compound soy protein on the growth performance and intestinal health of juvenile American eels (Anguilla rostrata)[J]. Animals, 2024, 14(21):3096.

DOI

[17]
WANG Q, QI Z T, FU W L, et al. Research and prospects of enzymatic hydrolysis and microbial fermentation technologies in protein raw materials for aquatic feed[J]. Fermentation, 2024, 10(12):648.

DOI

[18]
WANG D P, DU H L, DANG X Q, et al. Enzymatic hydrolysis processing of soybean meal altered its structure and in vitro protein digestive dynamics in pigs[J]. Frontiers in Veterinary Science, 2024,11:1503817.

[19]
JIANG K M, LIU B, SUN C X, et al. Promotion of improved intestinal barrier health by soybean-derived bioactive peptides in Chinese mitten crab (Eriocheir sinensis) fed a low fishmeal diet[J]. British Journal of Nutrition, 2024, 131(6):974-986.

DOI

[20]
SAREEN J, SHI D, STONE A K, et al. Effect of enzyme hydrolysis on the physicochemical,functional,and nutritional properties of pea and faba bean protein isolates[J]. European Food Research and Technology, 2023, 249(12):3175-3190.

DOI

[21]
LIU X, CHI S Y, LI S, et al. Substitution of fish meal with enzyme-treated soybean in diets for juvenile largemouth bass (Micropterus salmoides)[J]. Aquaculture Nutrition, 2021, 27(5):1569-1577.

DOI

[22]
TAN K, BIAN Z Y, LIANG H Q, et al. Enzymolytic soybean meal-impact on growth performance,nutrient digestibility,antioxidative capacity,and intestinal health of weaned piglets[J]. Frontiers in Veterinary Science, 2024,11:1381823.

[23]
ZHU J S, LIU D D, LU F, et al. A novel approach to produce soy protein isolate:direct enzymatic hydrolysis of high-temperature soybean meal using proteinase produced by microbial solid-state fermentation[J]. International Journal of Biological Macromolecules, 2024, 280(Pt 1):135598.

DOI

[24]
闫昭明, 刘霜莉, 黄华山, 等. 脂肪酶的作用机理及分泌调节研究进展[J]. 动物营养学报, 2021, 33(7):3622-3628.

DOI

YAN Z M, LIU S L, HUANG H S, et al. Research progress on mechanism and secretion regulation of lipase[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):3622-3628. (in Chinese)

[25]
LIANG Q P, YUAN M X, XU L P, et al. Application of enzymes as a feed additive in aquaculture[J]. Marine Life Science & Technology, 2022, 4(2):208-221.

[26]
YANG Y S, KUMRUNGSEE T, OKAZAKI Y, et al. Potential roles of exogenous proteases and lipases as prebiotics[J]. Nutrients, 2025, 17(5):924.

DOI

[27]
MURASHITA K, MATSUNARI H, FURUITA H, et al. Effects of dietary soybean meal on the digestive physiology of red seabream Pagrus major[J]. Aquaculture, 2018,493:219-228.

[28]
宋燕. 酶解大豆蛋白对生长中期草鱼生长性能和肌肉品质的影响及机制研究[D]. 博士学位论文. 雅安: 四川农业大学,2020:48-49.

SONG Y. Effect of enzyme-treated soy protein on growth performance and flesh quality as well as the related mechanisms in on-growing grass carp (Ctenopharyngodon idella)[D]. Ph.D.Thesis. Ya’an: Sichuan Agricultural University,2020:48-49. (in Chinese)

[29]
LU P, XUE W Y, ZHANG X L, et al. Heat-induced protein oxidation of soybean meal impairs growth performance and antioxidant status of broilers[J]. Poultry Science, 2019, 98(1):276-286.

DOI PMID

[30]
CAO Y Z, LU J, CAI G L, et al. Quality improvement of soybean meal by yeast fermentation based on the degradation of anti-nutritional factors and accumulation of beneficial metabolites[J]. Journal of the Science of Food and Agriculture, 2024, 104(3):1441-1449.

DOI

[31]
张武肖, 江青青, 夏斯蕾, 等. 氨基酸对水产动物肌肉品质影响的研究进展[J]. 渔业科学进展, 2024, 45(6):220-232.

ZHANG W X, JIANG Q Q, XIA S L, et al. Research progress on the impact of amino acids on muscle quality in aquatic animals[J]. Progress In Fishery Sciences, 2024, 45(6):220-232. (in Chinese)

[32]
KASPY M S, HANNAIAN S J, BELL Z W, et al. The effects of branched-chain amino acids on muscle protein synthesis,muscle protein breakdown and associated molecular signalling responses in humans:an update[J]. Nutrition Research Reviews, 2024, 37(2):273-286.

DOI

[33]
POSEY E A, BAZER F W, WU G Y. Amino acids and their metabolites for improving human exercising performance[J]. Advances in Experimental Medicine and Biology, 2021,1332:151-166.

[34]
YOU Z R, BAI Y L, BO D D, et al. A review of taste-active compounds in meat:identification,influencing factors,and taste transduction mechanism[J]. Journal of Food Science, 2024, 89(12):8128-8155.

DOI

[35]
BECKENDORF L, LINKE W A. Emerging importance of oxidative stress in regulating striated muscle elasticity[J]. Journal of Muscle Research and Cell Motility, 2015, 36(1):25-36.

DOI PMID

[36]
KUENZ S, THURNER S, HOFFMANN D, et al. Effects of gradual differences in trypsin inhibitor activity on the estimation of digestible amino acids in soybean expellers for broiler chickens[J]. Poultry Science, 2022, 101(4):101740.

DOI

[37]
SCHNEIDER T L S, SCHEID R C, PEIXOTO N C, et al. Metabolic and intestinal morphometric responses of Nile tilapia fed diets containing soybean and protease[J]. Animals, 2025, 15(3):349.

DOI

[38]
HAO J Q, ZHANG X Y, WANG Z W, et al. Maillard reaction products of soybean protein hydrolysates and reducing sugar:structure and flavor insights[J]. Food Research International, 2025,202:115790.

[39]
SHEN H Y, LI Y X, SONG H, et al. Quality improvement of soybean meal by simultaneous microbial fermentation and enzymolysis and untargeted metabolomic analysis of its metabolites[J]. Food Bioscience, 2024,59:104090.

[40]
ZHOU H J, SUN Z P, ZHANG T, et al. Comparison of muscle texture characteristics and nutritional composition between gene-edited intermuscular-bone-free crucian carp and other varieties[J]. Fishes, 2025, 10(12):606.

DOI

[41]
翁泽鵾, 曾琪, 张凌康, 等. 不同投喂水平对大口黑鲈生长及肌肉品质的影响[J]. 水生生物学报, 2025, 49(11):102506.

WENG Z K, ZENG Q, ZHANG L K, et al. Different feeding patterns on growth and muscle quality in Micropterus salmoides[J]. Acta Hydrobiologica Sinica, 2025, 49(11):102506. (in Chinese)

[42]
YANG H, YUAN Q, RAHMAN M M, et al.Biochemical, histological,and transcriptomic analyses reveal underlying differences in flesh quality between wild and farmed ricefield eel (Monopterus albus)[J]. Foods, 2024, 13(11):1751.

DOI

[43]
MILLER K A, NISLEY M J, MENDOZA O F, et al. The effect of trypsin inhibitor unit concentrations from raw soybeans in grower pig performance and protein digestibility[J]. Journal of Animal Science, 2024,102 (Suppl.2):149-150.

[44]
CAO Y Z, XU M W, LU J, et al. Simultaneous microbial fermentation and enzymolysis:a biotechnology strategy to improve the nutritional and functional quality of soybean meal[J]. Food Reviews International, 2024, 40(5):1296-1311.

DOI

[45]
LU T, ABDALLA GIBRIL B A, XU J G, et al. Unraveling the genetic foundations of broiler meat quality:advancements in research and their impact[J]. Genes, 2024, 15(6):746.

DOI

[46]
LANG Y M, ZHANG S S, XIE P, et al. Muscle fiber characteristics and postmortem quality of longissimus thoracis,psoas major and semitendinosus from Chinese Simmental bulls[J]. Food Science & Nutrition, 2020, 8(11):6083-6094.

DOI

[47]
HUO W R, WENG K Q, GU T T, et al. Effect of muscle fiber characteristics on meat quality in fast- and slow-growing ducks[J]. Poultry Science, 2021, 100(8):101264.

DOI

[48]
MEI Z C, ZHANG D W, HU B, et al. FBXO32 targets c-Myc for proteasomal degradation and inhibits c-Myc activity[J]. The Journal of Biological Chemistry, 2015, 290(26):16202-16214.

DOI

[49]
ALBUQUERQUE A, ÓVILO C, NÚÑEZ Y, et al. Transcriptomic profiling of skeletal muscle reveals candidate genes influencing muscle growth and associated lipid composition in Portuguese local pig breeds[J]. Animals, 2021, 11(5):1423.

DOI

[50]
TITOVA A, BILYALOV A, FILATOV N, et al. Muscle aging heterogeneity:genetic and structural basis of sarcopenia resistance[J]. Genes, 2025, 16(8):948.

DOI

[51]
HERNÁNDEZ-HERNÁNDEZ J M, GARCÍA-GONZÁLEZ E G, BRUN C E, et al. The myogenic regulatory factors,determinants of muscle development,cell identity and regeneration[J]. Seminars in Cell & Developmental Biology, 2017,72:10-18.

[52]
DAVIS J, SALOMONIS N, GHEARING N, et al. MBNL1-mediated regulation of differentiation RNAs promotes myofibroblast transformation and the fibrotic response[J]. Nature Communications, 2015, 6(1):10084.

DOI

[53]
ZAMMIT P S. Function of the myogenic regulatory factors Myf5,MyoD,myogenin and MRF4 in skeletal muscle,satellite cells and regenerative myogenesis[J]. Seminars in Cell & Developmental Biology, 2017,72:19-32.

[54]
DELLA GUARDIA L, LUZI L, CODELLA R. Muscle-UCP3 in the regulation of energy metabolism[J]. Mitochondrion, 2024,76:101872.

[55]
HAN G L, WANG P C, LI Y, et al. Passivation of trypsin inhibitors in soybean protein concentrate modulates the structural and functional properties of the soya proteins[J]. International Journal of Biological Macromolecules, 2025, 320(Pt 3):145965.

DOI

[56]
NICHELE S, PHILLIPS S M, BOAVENTURA B C B. Plant-based food patterns to stimulate muscle protein synthesis and support muscle mass in humans:a narrative review[J]. Applied Physiology,Nutrition,and Metabolism, 2022, 47(7):700-710.

DOI

[57]
KAZYKEN D, DAME S G, WANG C, et al. Unexpected roles for AMPK in the suppression of autophagy and the reactivation of MTORC1 signaling during prolonged amino acid deprivation[J]. Autophagy, 2024, 20(9):2017-2040.

DOI PMID

[58]
PENG K, CHEN X Y, LU H J, et al. Effect of dietary soybean meal on growth performance,apparent digestibility,intestinal digestive enzyme activity and muscle growth-related gene expression of Litopenaeus vannamei[J]. Frontiers in Marine Science, 2022,9:945417.

[59]
SHEN N N, SONG Z C, XIA C C, et al. Comparative evaluation of soybean meal vs. extruded soybean meal as a replacer for fishmeal in diets of olive flounder (Paralichthys olivaceus):effects on growth performance and muscle quality[J]. Aquaculture, 2024,578:740136.

[60]
ONO K, TANAKA M, IKEJI T, et al. Acute effects of lactic acid-fermented and enzyme-digested soybean on protein synthesis via mTOR signaling in the skeletal muscle[J]. Bioscience,Biotechnology & Biochemistry, 2020, 84(11):2360-2366.

[61]
程改平, 李明亮, 刘婧, 等. 小麦肽及其与大豆肽、豌豆肽复配肽的体外组合对TNF-α刺激C2C12骨骼肌细胞蛋白表达的影响[J]. 食品与发酵工业, 2024, 50(2):153-158.

DOI

CHENG G P, LI M L, LIU J, et al. Effects of wheat oligopeptides and its combination with soybean oligopeptides and pea oligopeptides on protein expression in C2C12 skeletal muscle cells stimulated by TNF-α in vitro[J]. Food and Fermentation Industries, 2024, 50(2):153-158. (in Chinese)

[62]
ADEVA-ANDANY M M, FERNÁNDEZ-FERNÁNDEZ C, LÓPEZ-PEREIRO Y, et al. The effects of glucagon and the target of rapamycin (TOR) on skeletal muscle protein synthesis and age-dependent sarcopenia in humans[J]. Clinical Nutrition ESPEN, 2021,44:15-25.

[63]
JAISWAL N, GAVIN M, LORO E, et al. AKT controls protein synthesis and oxidative metabolism via combined mTORC1 and FOXO1 signalling to govern muscle physiology[J]. Journal of Cachexia,Sarcopenia and Muscle, 2022, 13(1):495-514.

DOI

[64]
KINCHELOE G N, ROBERSON P A, TORO A L, et al. 4E-BP1/2 deletion enhances mRNA cap-binding complex assembly and protein synthesis in immobilized skeletal muscle but is not sufficient to prevent muscle atrophy[J]. The FASEB Journal, 2022, 36(Suppl.1):R3610.

[65]
LIU Y, VERTOMMEN D, RIDER M H, et al. Mammalian target of rapamycin-independent S6K1 and 4E-BP1 phosphorylation during contraction in rat skeletal muscle[J]. Cellular Signalling, 2013, 25(9):1877-1886.

DOI PMID

[66]
GAN W J, ZHANG C Y, SIU K Y, et al. ULK1 phosphorylates Sec23A and mediates autophagy-induced inhibition of ER-to-Golgi traffic[J]. BMC Cell Biology, 2017, 18(1):22.

DOI PMID

[67]
MENON M B, DHAMIJA S. Beclin 1 phosphorylation-at the center of autophagy regulation[J]. Frontiers in Cell and Developmental Biology, 2018,6:137.

[68]
KRUSE R, VIND B F, PETERSSON S J, et al. Markers of autophagy are adapted to hyperglycaemia in skeletal muscle in type 2 diabetes[J]. Diabetologia, 2015, 58(9):2087-2095.

DOI PMID

[69]
TRIOLO M, SLAVIN M, KIM Y, et al. Lysosomal alterations in skeletal muscle plasticity-an investigation of age,exercise and disuse[J]. The FASEB Journal, 2020, 34(Suppl.1):1.

[70]
KAR S K, JANSMAN A J M, BENIS N, et al. Dietary protein sources differentially affect microbiota,mTOR activity and transcription of mTOR signaling pathways in the small intestine[J]. PLoS One, 2017, 12(11):e0188282.

DOI

Outlines

/