RESEARCH PAPER

Isolation, Identification, Metabolic Characteristics and in Vitro Probiotic Potential of Two Rumen-Derived Saccharomyces cerevisiae Strains

  • LIU Qian , 1, 2 ,
  • SUN Mingyuan 3 ,
  • ZHONG Rongzhen , 1, 3, *
Expand
  • 1 Jilin Province Feed Processing and Ruminant Precision Breeding Cross regional Cooperation Technology Innovation Center, Northeast Institute of Geography and Agroecology, Chinese Academy of Sciences, Changchun 130102, China
  • 2 University of Chinese Academy of Sciences, Beijing 100049, China
  • 3 Jilin Green+ Biotechnology Co., Ltd., Changchun 130102, China
* professor, E-mail:

Received date: 2025-11-07

  Online published: 2026-07-14

Abstract

This study aimed to isolate and identify “autochthonous” Saccharomyces cerevisiae strains adapted to the rumen environment, and to systematically compare their differences in metabolic characteristics and in vitro probiotic potential, thereby revealing the potential links among strain origin, metabolic phenotype, and probiotic function at the metabolite level, so as to provide a basis for developing highly colonizing probiotics specifically for ruminants. One yeast strain was isolated and purified from the rumen fluid of healthy adult beef cattle and one from healthy adult sheep using YPD solid medium. Species identification was performed through morphological observation, methylene blue staining and ITS sequence analysis. Subsequently, the isolated strains were characterized for growth characteristics, acid-producing capacity, tolerance to acid and bile salts, tolerance to artificial gastric and intestinal fluids, surface hydrophobicity, auto-aggregation ability, antimicrobial activity and antibiotic susceptibility. Furthermore, untargeted metabolomics was employed to analyze the differences in metabolites and related pathways between the two isolated strains. The results showed that one Saccharomyces cerevisiae strain was successfully isolated from the rumen fluid of adult beef cattle and one from adult sheep, and they were designated as GRJA008 and GRJA012, respectively. Both strains exhibited good bile salt tolerance (relative survival rate>75% at 24 h) when the bile salt concentration was≥0.2%, showed high tolerance to artificial intestinal fluid (survival rate>95% at 3 h), and possessed strong auto-aggregation ability (auto-aggregation rate>69%). Strain GRJA008 displayed strong antimicrobial activity and a broad antibiotic susceptibility spectrum, whereas strain GRJA012 was insensitive to multiple antibiotics. Untargeted metabolomics analysis revealed a total of 264 differential metabolites between strains GRJA008 and GRJA012, which were primarily involved in lipid metabolism, sterol metabolism and bile acid biosynthesis. The average correlation coefficient between the two metabolic clusters-“lipid-sterol metabolism” and “bile acid-phenolics”, was approximately -0.7, indicating a clear antagonistic relationship between them. The differences in metabolic phenotypes between the two Saccharomyces cerevisiae strains were closely associated with their in vitro probiotic characteristics. In summary, Saccharomyces cerevisiae GRJA008 and GRJA012 isolated from the rumen fluid of ruminants in this study both exhibited excellent in vitro probiotic properties and have the potential to serve as candidate probiotic strains for ruminants. Notably, there were significant differences in metabolic phenotypes between the two strains, a finding that provides a new research perspective for the precise screening and application of probiotics based on metabolic phenotypes.

Cite this article

LIU Qian , SUN Mingyuan , ZHONG Rongzhen . Isolation, Identification, Metabolic Characteristics and in Vitro Probiotic Potential of Two Rumen-Derived Saccharomyces cerevisiae Strains[J]. Chinese Journal of Animal Nutrition, 2026 , 38(7) : 5483 -5505 . DOI: 10.12418/CJAN2026.438

瘤胃是一个复杂且动态变化的微生态系统,其内共生的微生物群落在宿主营养代谢、免疫调节及健康维持中发挥着重要作用[1-2]。近年来,基于微生物组的调控策略,尤其是益生菌的应用,已成为改善反刍动物健康、提高饲料利用效率及减少抗生素使用的有效手段。酿酒酵母(Saccharomyces cerevisiae)具有调节动物肠道菌群、增强免疫功能、促进营养物质消化吸收等多种功能[3-7],是目前研究和应用最广泛的益生酵母菌之一。然而,一个关键的限制因素在于,目前商业化应用的酵母菌大多分离自发酵食品或环境[8],其生理特性与反刍家畜瘤胃环境之间的适应性存在局限,导致其在宿主体内难以高效定植并持续发挥益生作用。相比之下,从动物自身分离得到的“原籍菌”或“土著菌”,因与宿主长期共同进化,更能适应胃肠道环境,具备更强的定植能力,从而能最大化地发挥其益生特性[9-10]。因此,这类菌株在开发高效、专用的动物益生菌制剂方面,具有不可替代的优势。
已有研究表明,与非瘤胃源菌株相比,瘤胃源酵母菌在耐酸、耐胆盐、抑菌活性及肠道定植能力等方面表现出更优异的特性,并在调节瘤胃发酵、提高饲料利用率方面具有积极作用。王尧[11]从湖羊瘤胃液中分离出1株酵母菌,发现其对酸性和胆盐环境具有较强的耐受性;唐柯楠[12]从奶牛瘤胃液中筛选出2株耐酸、耐氧的酵母菌,并通过体外发酵试验证实,这2株瘤胃源酵母菌可显著改善瘤胃菌群结构。此外,研究还发现,瘤胃源酵母菌在调节瘤胃发酵模式[13]、提高饲料利用率[14-15]及改善动物生产性能[16-17]方面均具有积极作用。
尽管上述研究证实了瘤胃源酵母菌的应用潜力,但是目前针对瘤胃源酿酒酵母的研究多集中于单一菌株的分离和基础特性描述,缺乏对不同来源菌株间的系统性功能比较,尤其是从非靶向代谢组学层面系统比较不同宿主来源的瘤胃源酿酒酵母益生功能基础及机理的研究尚属空白。此外,现有商业酵母菌株多为非瘤胃来源,在反刍动物体内的适应性和定植能力差,益生作用受限。因此,本研究拟从不同种类健康反刍家畜瘤胃中分离筛选具有优良益生特性的“原籍”酵母菌株,结合非靶向代谢组学技术系统评估其体外益生潜能,并深入解析菌株间代谢差异及其与益生功能的关联,旨在阐明瘤胃源酿酒酵母的代谢表型与功能分化之间的内在联系,从代谢物层面揭示“宿主来源-代谢特征-益生功能”的潜在联系,为创制高效安全的反刍动物专用益生菌添加剂提供理论依据和候选菌株。

1 材料与方法

1.1 试验材料

1.1.1 主要试剂

蛋白胨、牛肉膏购自北京奥博星生物技术有限责任公司;酵母粉、琼脂粉、吐温-80购自安徽白鲨生物科技有限公司;葡萄糖购自天津市光复科技发展有限公司;氯化钠购自天津鑫铂特化工有限公司;胆盐购自北京索莱宝科技有限公司;抗生素药敏纸片购自湖南比克曼生物科技有限公司。

1.1.2 仪器设备

DHS-NX-3R型高速台式离心机,北京鼎昊源科技有限公司;BM2000型生物显微镜,宁波永兴光学仪器有限公司;PHS-3E型pH计,上海雷磁仪器有限公司;CBV45S超净工作台,北京尚方京工科技有限公司;XS-ZDIA型恒温振荡培养箱,象尚昱科(上海)实验仪器有限公司;LC-SPX-70B型生化培养箱,上海力辰仪器科技有限公司;DXL-100型高压灭菌器,山东德祥仪器有限公司;UResder Eyes Ⅰ型全波长酶联免疫分析仪,杭州优米仪器有限公司;DW-86L437T型低温保存箱,澳柯玛股份有限公司。

1.1.3 样品来源

所用酵母菌株的分离材料——瘤胃液,采自吉林省长春市公主岭试验基地内健康、处于育肥期的成年海福特母牛和成年小尾寒羊公羊。所有试验动物在试验采样前至少1个月内未在其饲粮中添加任何外源益生菌(包括酵母菌制剂),以确保所分离的酵母菌株为瘤胃内源微生物,排除外源酵母菌干扰。

1.1.4 病原指示菌

金黄色葡萄球菌(Staphylococcus aureus)ATCC25923、肠道沙门氏菌(Salmonella enterica)ATCC14028均由中国农业科学院特产研究所特种动物营养与饲料团队提供。

1.2 试验方法

1.2.1 菌株分离

应用口腔插管法分别无菌采集健康成年海福特母牛和健康成年小尾寒羊公羊的瘤胃液10 mL,加入到含有90 mL磷酸盐缓冲液(PBS)的锥形瓶中,振荡混匀后室温放置。取100 μL上清液进行系列倍比稀释,分别吸取10-4、10-5、10-6、10-7梯度稀释液100 μL,均匀涂布于YPD固体培养基进行培养,30 ℃恒温培养过夜。挑取纯化后的单克隆菌落,观察菌落形态后进一步采用美兰染色法进行细胞形态观察。

1.2.2 分子生物学鉴定

将分离菌株培养24 h后离心收集菌体沉淀,使用真菌DNA提取试剂盒[生工生物工程(上海)股份有限公司]提取分离菌株的基因组DNA作为模板,使用引物对ITS1(5'-TCCGTAGGTGAACCTGCGG-3')和ITS4(5'-TCCTCCGCTTATTGATATGC-3')进行PCR扩增。PCR反应体系总体积为25 μL,包含2×PremixTaq 12.5 μL,上、下游引物各1 μL,基因组DNA 1 μL,剩余体积以ddH2O补足。PCR扩增程序设置如下:95 ℃预变性5 min;随后进行30个循环,每个循环包括94 ℃变性30 s,57 ℃退火30 s,72 ℃延伸90 s;最终72 ℃延伸10 min。反应结束后,取3 μL PCR扩增产物,通过1.5%琼脂糖凝胶电泳验证结果,将符合预期的PCR产物送至生工生物工程上海(股份)有限公司进行测序。将测序结果在NCBI数据库中用BLAST程序进行同源性比对分析。

1.2.3 生长曲线测定

取活化培养后的分离菌株,以2%接种量接种于YPD液体培养基,30 ℃恒温培养,分别于0、1、2、3、4、5、6、8、10、12、14、20、22、24、30、36、48 h时取样测定菌液在600 nm处的吸光度(OD600)值。以培养时间为横坐标,以菌液的OD600值为纵坐标,绘制分离菌株的生长曲线。

1.2.4 产酸能力测定

取活化培养后的分离菌株,以2%接种量接种于YPD液体培养基,30 ℃恒温培养,分别于0、1、2、3、4、5、6、8、10、12、14、20、22、24、36、48 h时取样测定菌液pH。以培养时间为横坐标,以菌液的pH为纵坐标,绘制分离菌株的产酸曲线。

1.2.5 不同温度下生长曲线测定

取活化培养后的分离菌株,以2%接种量接种于YPD液体培养基,分别于25、28、30、37、45 ℃恒温培养,在不同温度下分别于0、1、2、3、4、5、6、8、10、12、14、20、22、24、36、48 h时取样测定菌液的OD600值。以培养时间为横坐标,以菌液的OD600值为纵坐标,绘制不同温度下分离菌株的生长曲线。

1.2.6 对酸的耐受性测定

取活化培养后的分离菌株,以2%接种量接种于初始pH分别为1.0、2.0、3.0、4.0、5.0、6.0、7.0的YPD液体培养基,于30 ℃恒温培养,分别于0、6、12、24、36、48 h时取样测定菌液的OD600值。以培养时间为横坐标,以菌液的OD600值为纵坐标,绘制分离菌株的生长曲线。

1.2.7 对胆盐的耐受性测定

取活化培养后的分离菌株,以2%接种量接种于胆盐终浓度分别为0、0.1%、0.2%、0.3%、0.4%、0.5%、0.6%的YPD液体培养基,30 ℃恒温培养,分别于0、6、12、24 h时取样测定菌液的OD600值,计算分离菌株的相对存活率,计算公式如下:
相对存活率(%)=100×At/A0
式中:At为培养t h时菌液的OD600值;A0为初始(培养 0 h时)菌液的OD600值。

1.2.8 对人工胃肠液的耐受性测定

人工胃液和人工肠液的配制方法参考《中华人民共和国药典》(2020年版)[18]
取活化培养24 h后的分离菌株菌液1 mL,于4 ℃、10 000×g离心10 min后弃去上清液,加入等体积无菌生理盐水重悬。各取10 mL人工胃液和人工肠液,分别加入1 mL重悬菌液,于30 ℃恒温条件下培养,分别于0和3 h时取样100 μL,经梯度稀释后涂布平板,通过活菌计数法计算存活率,评估分离菌株对人工胃液和人工肠液的耐受性。
取上述经人工胃液孵育3 h后的培养液10 mL,4 ℃、10 000×g离心10 min后弃去上清液,用PBS重悬2次,用等体积人工肠液重悬,30 ℃恒温培养。分别于0、3 h时取100 μL培养液梯度稀释后涂布平板,通过活菌计数法计算存活率,评估分离菌株对人工胃肠液的耐受性。
存活率的计算公式如下:
存活率(%)=100×log10(人工胃液、人工肠液或人工胃肠液孵育3 h时活菌数)/log10(人工胃液、人工肠液或人工胃肠液孵育0 h时活菌数)。

1.2.9 表面疏水性测定

将活化培养24 h的分离菌株菌液经PBS充分洗涤3次后,调节菌液OD600值为0.25±0.05(记为A0)后备用;取3 mL上述菌液与等体积二甲苯混合,涡旋振荡3 min,30 ℃静置孵育1 h后吸取水相测定OD600值(记为A1)。按如下公式计算表面疏水率:
表面疏水率(%)=100×(A0-A1)/A0

1.2.10 自凝聚性测定

将活化培养24 h的分离菌株菌液4 ℃、10 000×g离心10 min,收集菌体沉淀,沉淀经PBS充分洗涤3次后,用2倍体积PBS重悬备用。取2 mL上述菌悬液,涡旋振荡10 s,测定其OD600值(记为A0);之后30 ℃静置孵育2 h后,吸取上清液再次测定OD600值(记为A1)。按如下公式计算自凝聚率:
自凝聚率(%)=100×(A0-A1)/A0

1.2.11 抑菌活性测定

选取沙门氏菌和金黄色葡萄球菌为病原指示菌,活化后分别吸取100 μL均匀涂布于LB固体培养基表面,完全干燥后使用无菌琼脂打孔器在平板上成品字打孔。吸取100 μL活化培养24 h后的待测菌液加入琼脂孔中,将平板正置于恒温培养箱中培养24 h,然后用游标卡尺精确测量抑菌圈直径。

1.2.12 对常见抗生素的敏感性测定

取活化的待测菌液200 μL,均匀涂布在YPD固体培养基上,待平板吸收完全后使用无菌镊贴附相应药敏片,培养箱中静置过夜,使用游标卡尺精确量取抑菌圈直径。药敏片种类、含药量及抑菌圈直径判断标准见表1
表1 药敏片种类、含药量及抑菌圈直径判定标准

Table 1 Types of antibiotic sensitivity discs, drug loading and criteria for judging inhibition zone diameter

抗生素名称
Antibiotics names
含药量
Drug loading
抑菌圈直径判断标准
Criteria for judging inhibition zone diameter/mm
耐药
Resistance (R)
中介
Intermediate (I)
敏感
Sensitive (S)
氯霉素Chloramphenicol 30 μg/片 ≤12 13~17 ≥18
红霉素Erythromycin 15 μg/片 ≤13 14~22 ≥23
万古霉素Vancomycin 30 μg/片 ≤8 9~12 ≥13
四环素Tetracycline 30 μg/片 ≤14 15~18 ≥19
克林霉素Clindamycin 2 μg/片 ≤13 14~17 ≥18
庆大霉素Gentamycin 10 μg/片 ≤12 13~14 ≥15
头孢拉定Cefradine 30 μg/片 ≤14 15~17 ≥18
阿奇霉素Azithromycin 15 μg/片 ≤10 11~15 ≥16
环丙沙星Ciprofloxacin 5 μg/片 ≤15 16~20 ≥21
青霉素Penicillin 10 U/片 ≤19 20~27 ≥28
氨苄西林Ampicillin 10 μg/片 ≤13 14~16 ≥17
头孢哌酮Cefoperazone 75 μg/片 ≤12 13~15 ≥16

1.2.13 非靶向代谢组学分析

代谢物提取:每个分离菌株设6个生物学重复(n=6),分别独立培养并取样。吸取100 μL待测菌液与400 μL冰甲醇混匀,于-20 ℃冰箱静置0.5 h进行蛋白质沉淀,然后4 ℃、20 000×g离心10 min,吸取上清液待测,同时每个样品等量取出一定体积混合成质控(QC)样品。
色谱条件:色谱分离由ACQUITY UPLC HSS T3色谱柱(100 mm×2.1 mm, 1.8 μm,Waters,美国)完成;流动相A为5 mmol/L乙酸铵+5 mmol/L乙酸水溶液,流动相B为乙腈;梯度洗脱程序为:0~0.8 min,2%~70% B;0.8~2.8 min,70%~90% B;2.8~5.3 min,90%~99% B;5.3~5.9 min,99% B;5.9~7.5 min,99%~2% B;7.5~7.6 min,2% B;7.6~10.0 min,2% B;流速0.35 mL/min;进样量4 μL;色谱柱柱温40 ℃。
质谱条件:使用电喷雾离子源,正、负电喷雾模式下各采集1次;离子源温度为350 ℃;毛细管电压在正模式下为+3.8 kV,负模式下为-3.4 kV;吹扫气流速为0 arb;辅助气流速为15 arb;鞘气流速为50 arb。数据采集模式为全扫描和数据依赖采集(DDA),在1个采集循环中,全扫描范围为70~1 050 Da,分辨率为70 000,自动增益控制(AGC)为3E6,最大离子注入时间为100 ms;在全扫中选择响应强度高于100 000的前5个离子进行二级扫描,二级扫描分辨率为17 500,最大离子注入时间为50 ms;动态排除时间设置为6 s。
信息分析:将液相色谱-质谱(LC-MS)联用仪原始数据文件转换成mzXML格式,然后采用R软件的XCMS和metaX工具箱进行峰拾取、峰分组、保留时间校正、二次峰分组等预处理。结合保留时间和质荷比(m/z)数据对各离子进行鉴定。利用KEGG、HMDB数据库对代谢物进行标注、匹配和注释等。

1.3 数据统计与分析

体外益生特性各项试验均独立重复至少3次,相关数据经Excel 2019整理后,采用GraphPad Prism 8进行统计和作图,结果以“平均值±标准差”表示。代谢组学数据采用t检验比较组间差异,显著性水平设定为P<0.05,同时结合偏最小二乘判别分析(PLS-DA)所得的变量投影重要性(VIP)及差异倍数(FC)共同筛选差异代谢物(VIP≥1,FC≥1.2或FC≤0.83)。为降低假阳性风险,对P值进行错误发现率(FDR)校正,以Q值(Q-value)<0.05作为显著差异的补充判断依据。通过200次置换检验评估PLS-DA模型的有效性。基于超几何检验进行KEGG通路富集分析,将P<0.05的通路视为差异代谢物显著富集的功能类别。使用软件GSEA(v4.1.0)进行代谢物集富集分析,将同时满足|标准化富集得分|(|NES|)>1、名义P值(NOM.pval)<0.05、假发现率q值(FDR.qval)<0.25的KEGG通路判定为2组间存在显著差异。采用Pearson相关分析判断代谢物间的相关性,显著性阈值设定为P<0.05。代谢组学相关统计分析主要由R软件(version 4.0)完成,图形绘制借助联川生物云平台的云工具(访问链接 https://www.omicstudio.cn/tool)实现。

2 结果与分析

2.1 瘤胃源酿酒酵母的分离与鉴定

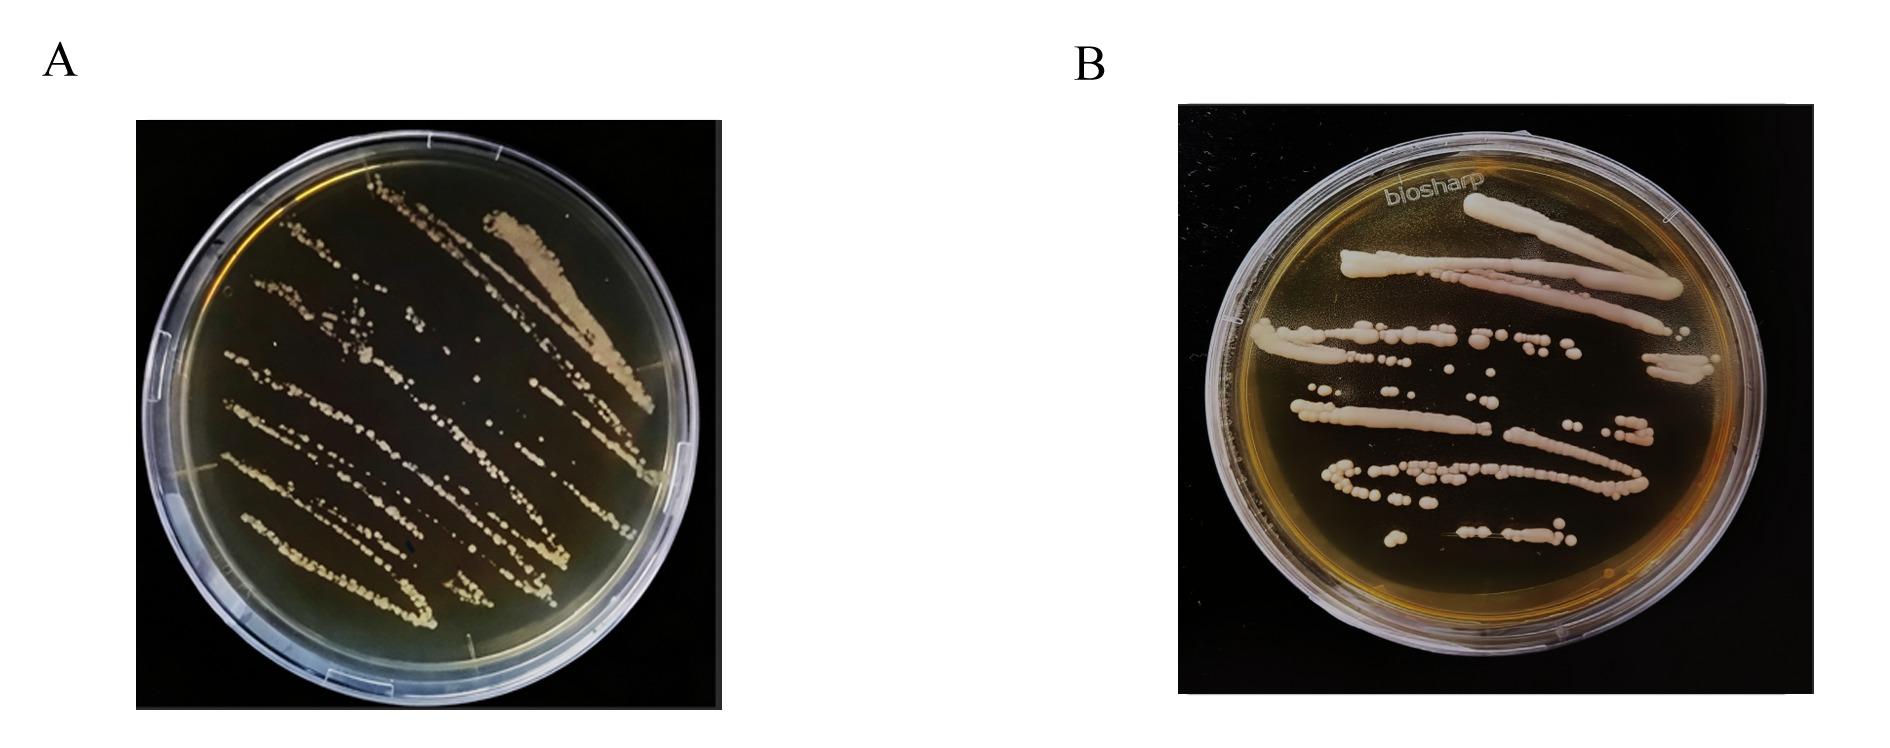
利用YPD固体培养基从健康成年海福特母牛瘤胃液中分离得到菌株GRJA008,从健康成年小尾寒羊公羊瘤胃液中分离得到菌株GRJA012,作为分离菌株用于后续研究。如图1所示,菌株GRJA008和GRJA012在YPD固体培养基上均形成乳白色至奶油色、圆形凸起、表面光滑、边缘整齐的菌落;美兰染色结果显示,这2个菌株的细胞均未被染色,呈规则的球形或卵圆形,并以出芽方式形成细胞簇,形态符合酿酒酵母的典型特征。利用通用引物进行PCR扩增和测序后,通过NCBI数据库进行序列同源性比对后发现,菌株GRJA008与登录号为OP897234.1和LC021489.1的酿酒酵母的同源性最高,基因序列相似度达100.00%;菌株GRJA012与登录号为KP674649.1和LC739390.1的酿酒酵母的同源性最高,基因序列相似度达99.88%。结合菌株形态、细胞形态特征及ITS序列分析结果,可判定分离菌株GRJA008和GRJA012均为酿酒酵母。菌株GRJA008和GRJA012已分别于2025年3月19日和2025年6月12日在中国典型培养物保藏中心(CCTCC)进行保藏,保藏编号分别为CCTCC M 2025450和CCTCC M 20251271。
图1 菌株GRJA008(A)和GRJA012(B)的菌落形态

Fig.1 Colony morphology of strains GRJA008 (A) and GRJA012 (B)

2.2 菌株GRJA008和GRJA012的生长曲线和产酸曲线

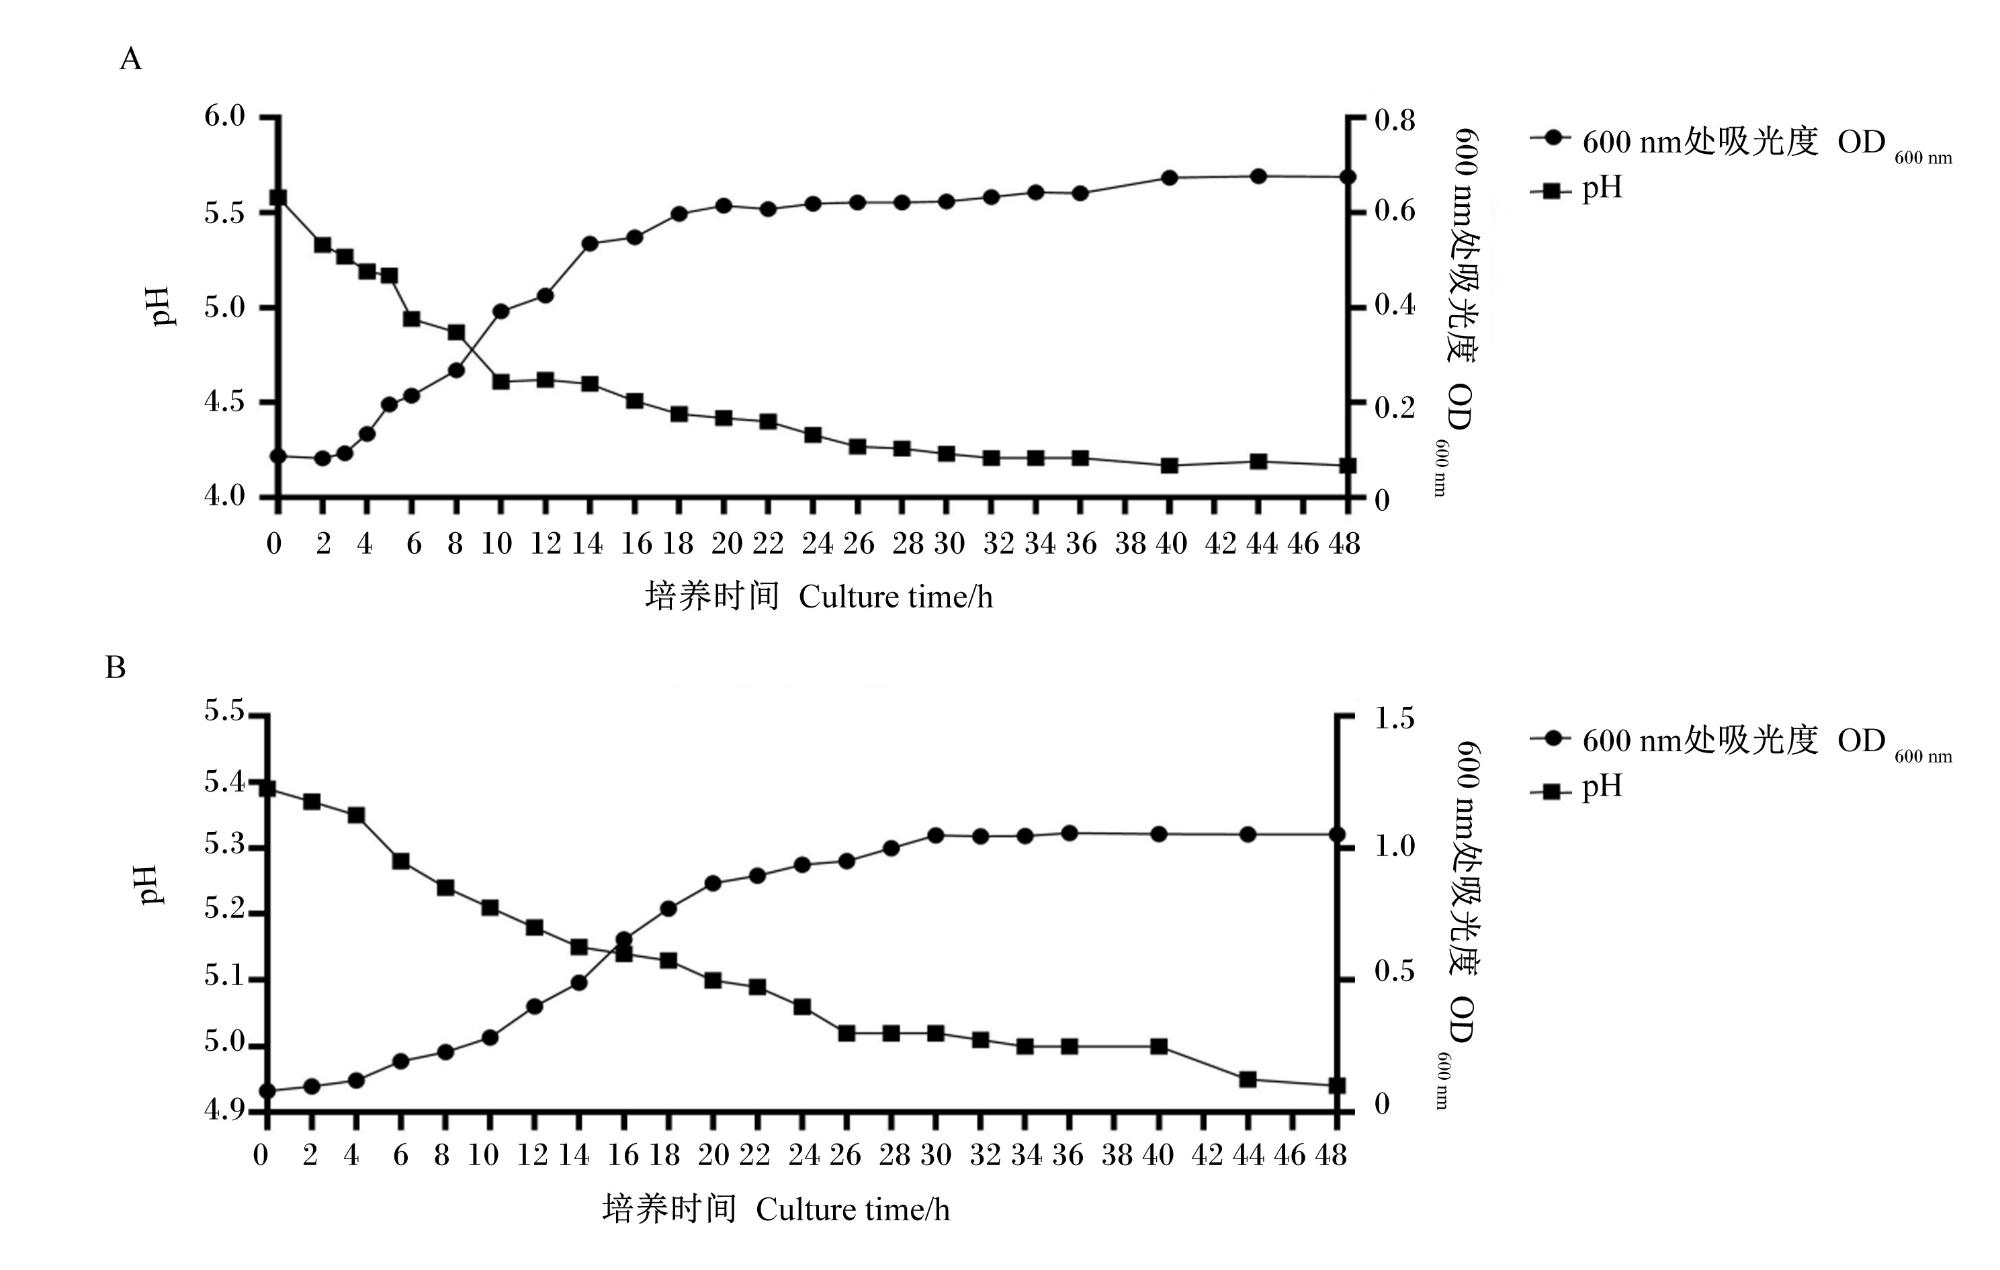
图2-A所示,菌株GRJA008在接种后的最初4 h内生长缓慢,随后生长速率提升进入快速增殖的对数生长期,24 h时OD600值达到0.619,之后趋于平稳达到生长稳定期;在接种4 h内pH从5.58缓慢下降到5.19,4~24 h内快速降至4.33,24 h后稳定在4.17~4.19。由此可见,菌株GRJA008可在24 h内达到最大生长量和较低的pH。如图2-B所示,菌株GRJA012在接种后的前6 h内生长缓慢,6 h后迅速进入对数生长期,30 h后趋于平稳;其pH变化相对温和:0~6 h内pH仅从5.39降至5.28;6~48 h内pH缓慢下降,整体降幅不足0.5。综上可知,菌株GRJA012在30 h内即可达到最大生长量,但产酸能力较弱,终末pH维持在4.94~5.00。
图2 菌株GRJA008(A)和GRJA012(B)的生长曲线和产酸曲线

Fig.2 Curves of growth and acid producing of strains GRJA008 (A) and GRJA012 (B)

2.3 菌株GRJA008和GRJA012的体外益生特性

2.3.1 菌株GRJA008和GRJA012不同温度下的生长曲线
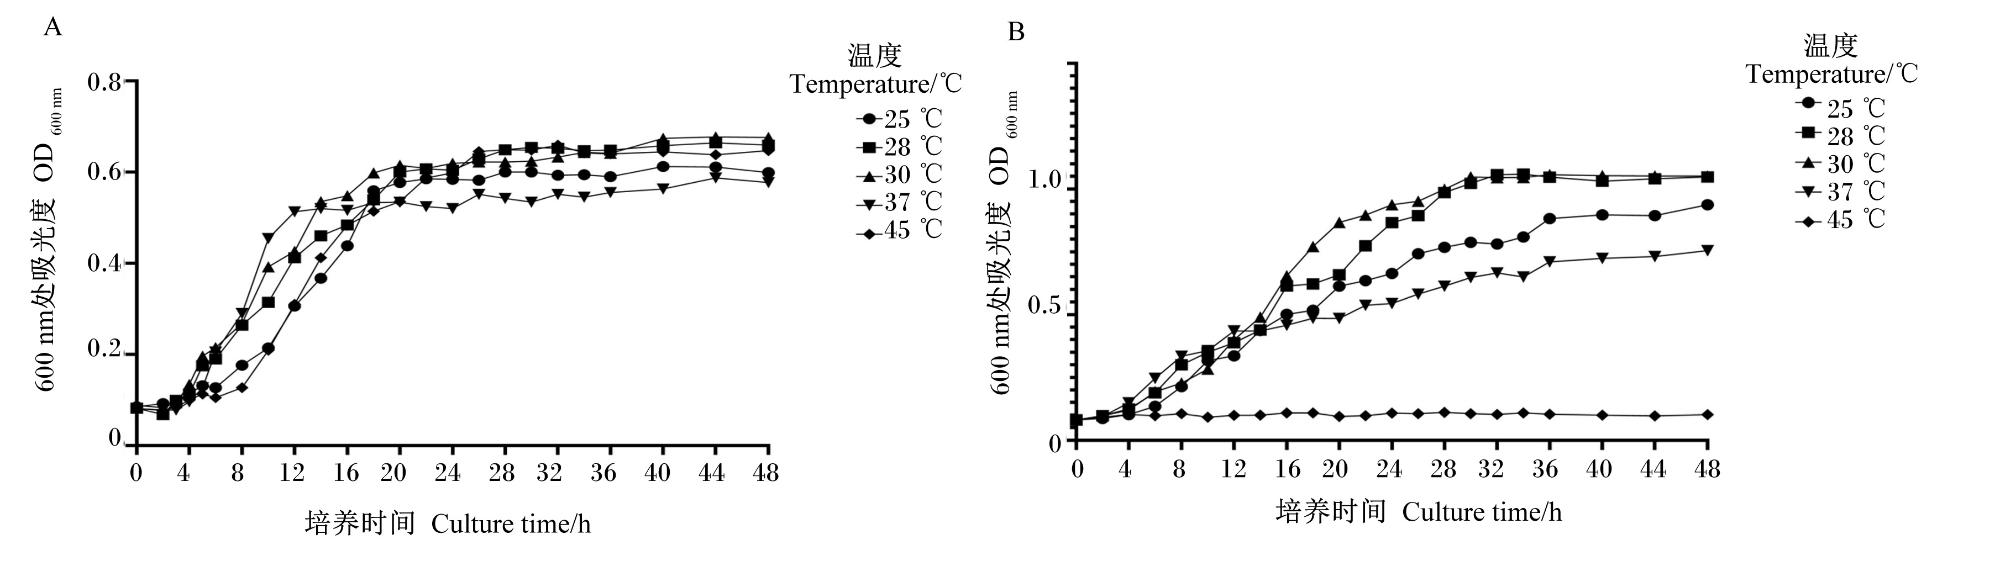
图3-A所示,通过比较不同温度下OD600值的变化趋势发现,当菌株GRJA008在30 ℃培养时,0~4 h内生长缓慢,处于生长延滞期,4 h后进入对数生长期,24 h后进入生长稳定期;当菌株GRJA008在25、28 ℃培养时,生长延滞期分别为6和4 h,对数生长期延长,且最终活菌数量低于30 ℃培养时;45 ℃高温胁迫下,菌株GRJA008在经历2 h的短暂延滞后开始增殖,6 h后生长迟缓,到22 h时开始出现提前衰亡。如图3-B所示,菌株GRJA012对温度更敏感,30 ℃为最适培养温度,延滞期为4 h,20 h进入对数生长期,30 h达到最大生长量;28与25 ℃的延滞期分别为4与6 h,对数期延长,平台期OD600值低于30 ℃培养时;37 ℃培养时,尽管延滞期缩短至2 h,但菌株GRJA012在16 h便进入生长稳定期,且其OD600值远低于30 ℃培养时,表明高温加速代谢却提前抑制增殖;45 ℃培养时,菌株GRJA012无增殖迹象,说明该温度已超菌株GRJA012耐受极限。综上可知,菌株GRJA008和GRJA012均在30 ℃下实现最短延滞期与最高生物量。
图3 菌株GRJA008(A)和GRJA012(B)不同温度下的生长曲线

Fig.3 Growth curves of strains GRJA008 (A) and GRJA012 (B) at different temperatures

2.3.2 菌株GRJA008和GRJA012对酸的耐受性

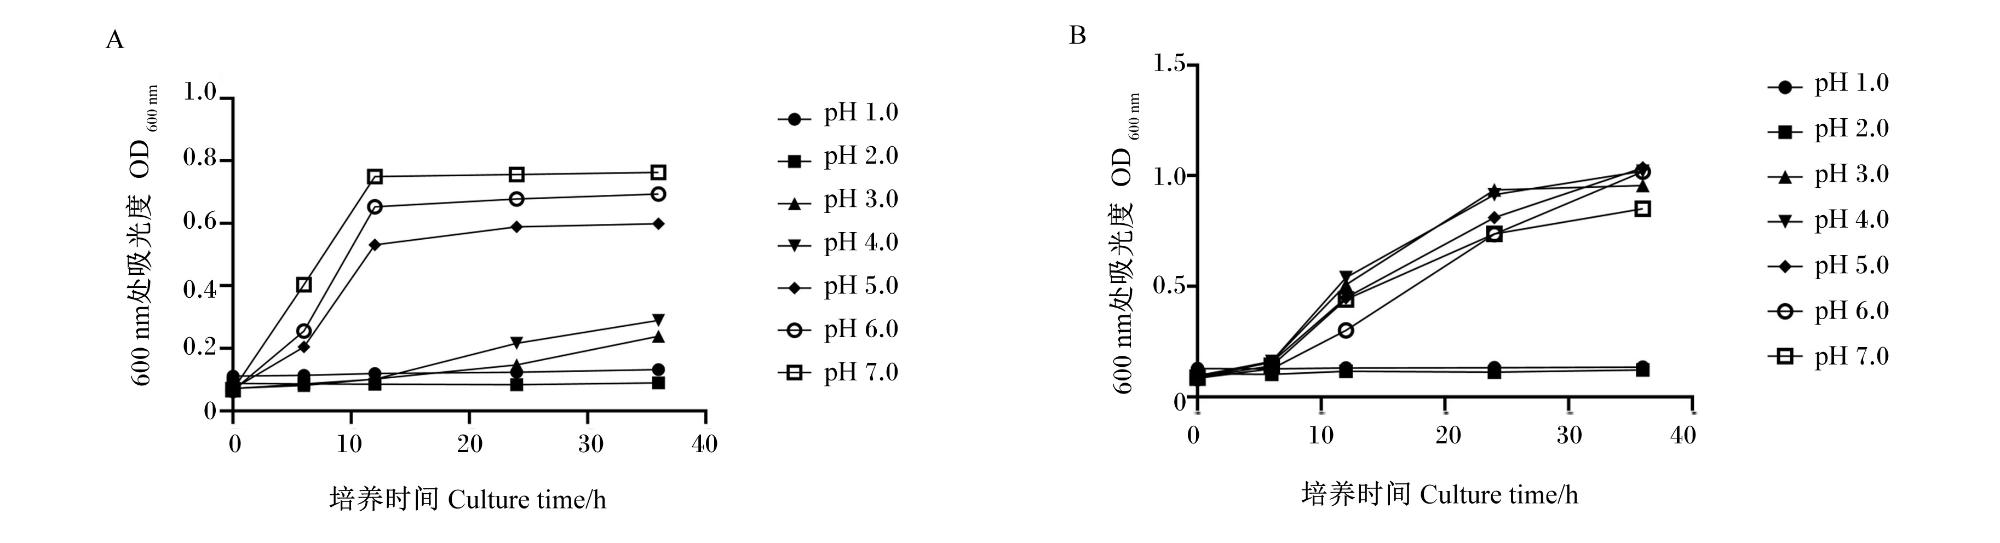
图4-A所示,菌株GRJA008在pH 6.0和7.0环境中生长迅速,能在短时间内迅速增殖;当培养基pH为5.0时,菌株GRJA008的生长速度和菌体数量明显低于pH为7.0时;当培养基pH为3.0和4.0时,菌体延滞期明显变长,对数生长期缩短;而当培养基pH≤2.0时,菌液OD600值未见任何变化,表明强酸环境完全抑制了菌株GRJA008的生长。如图4-B所示,菌株GRJA012在pH 5.0~7.0范围内生长良好;当培养基pH为3.0和4.0时,菌体延滞期延长;当培养基pH≤2.0时,菌株GRJA008的生长完全被抑制。综上可知,菌株GRJA008在pH≥6.0时生长最佳,pH 5.0为可耐受下限,对中性环境依赖度更高;菌株GRJA012在pH 4.0~7.0时均能保持高速增殖,具有更宽的酸耐受谱。
图4 菌株GRJA008(A)和GRJA012(B)在不同pH培养基中的生长曲线

Fig.4 Growth curves of strains GRJA008 (A) and GRJA012 (B) in media with different pH

2.3.3 菌株GRJA008和GRJA012对胆盐的耐受性

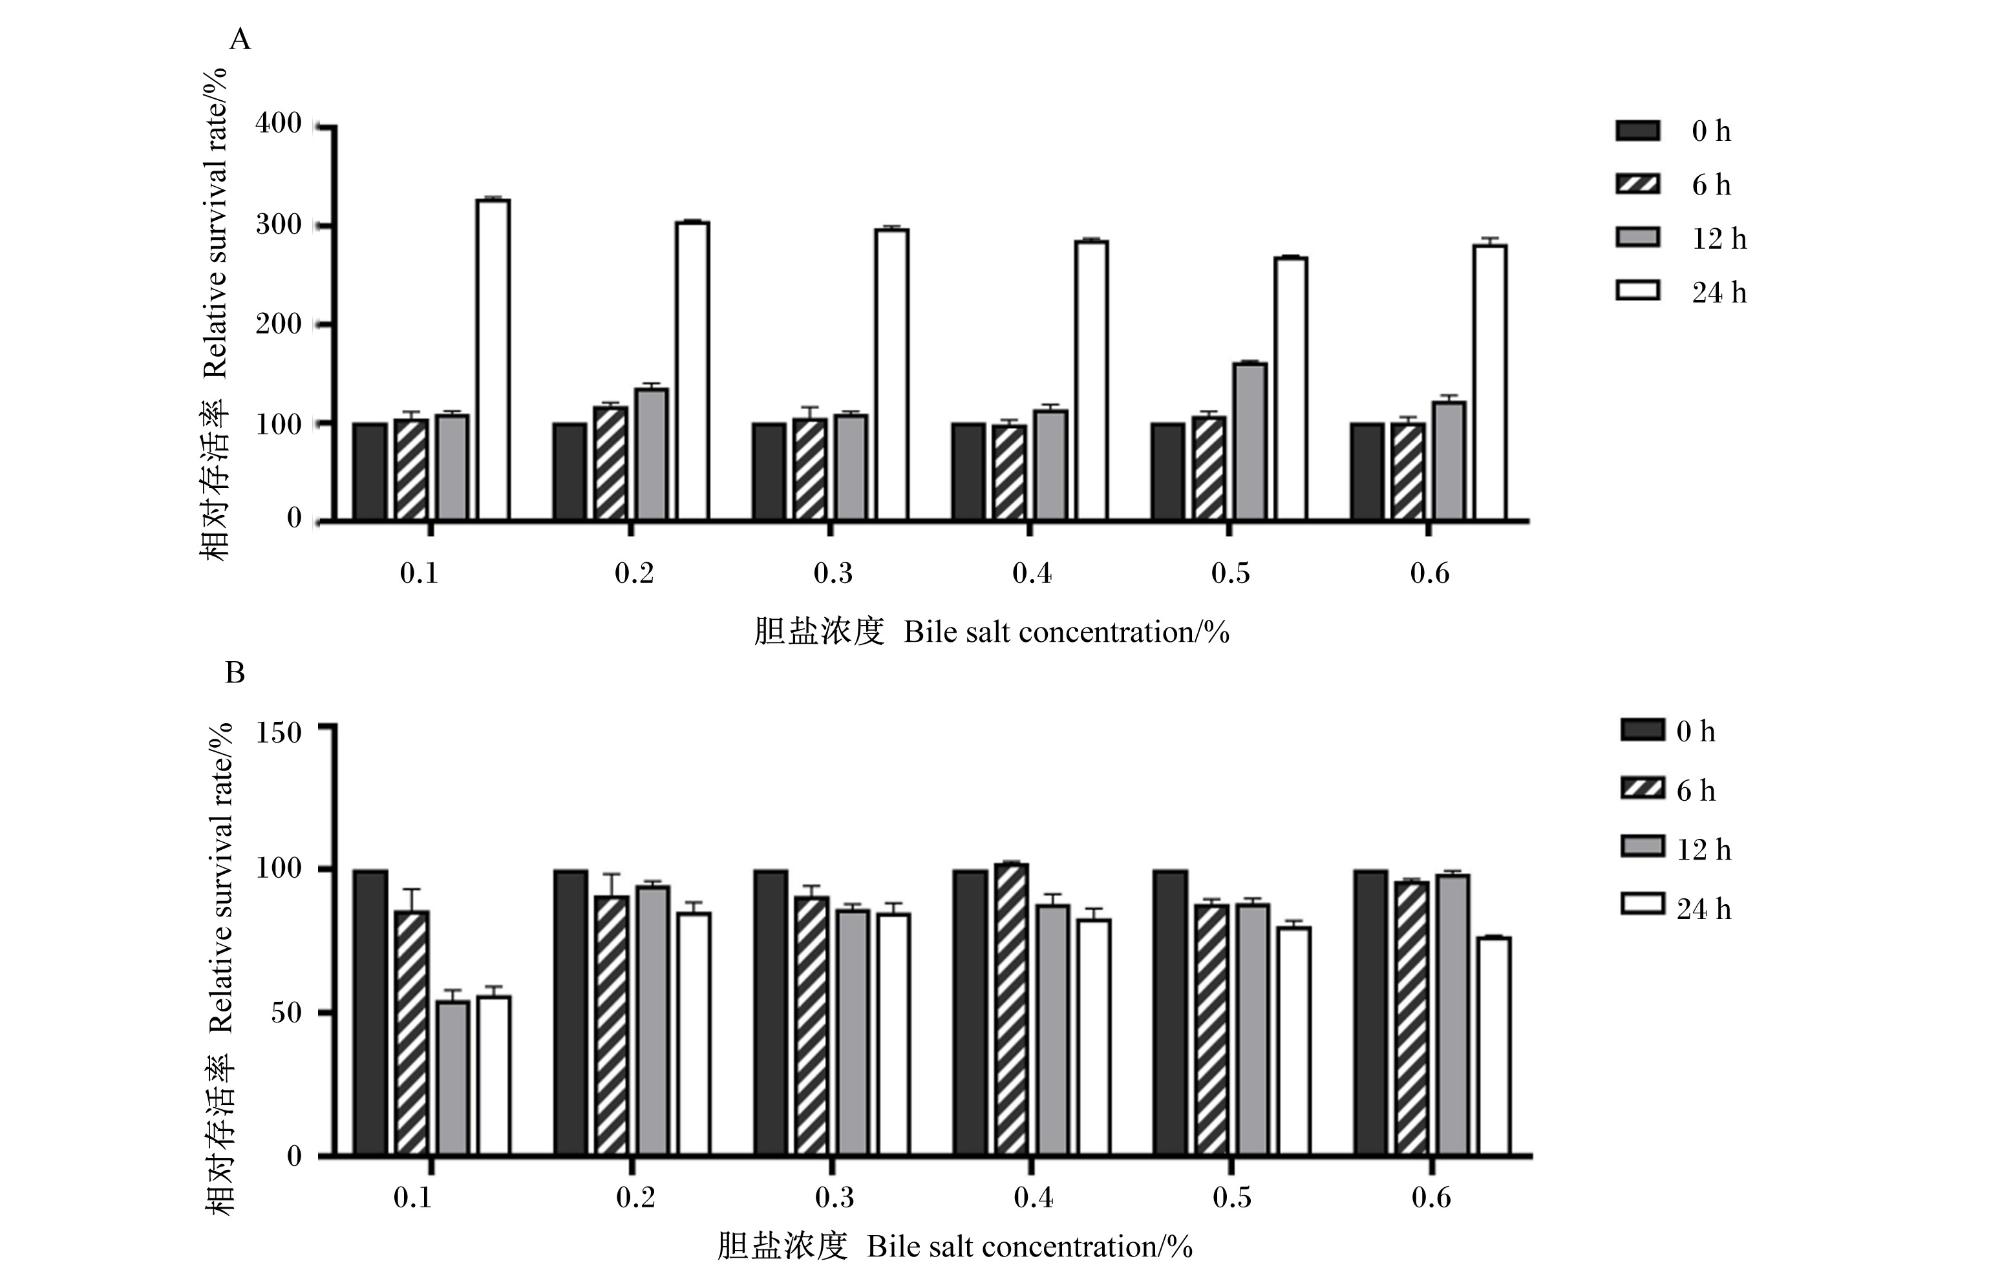
图5-A可知,在0.1%~0.6%胆盐浓度范围内,菌株GRJA008的相对存活率随时间延长而增加,其24 h相对存活率均远超0 h的初始水平(100%),表现出持续的增殖或耐受能力。由图5-B可知,菌株GRJA012的耐受模式则呈现浓度依赖性,在0.1%胆盐浓度下,其6 h相对存活率降至85.74%,12 h进一步降至54.38%,24 h相对存活率为56.21%,表明在此低胆盐浓度下菌株GRJA012受到持续抑制;在0.2%~0.6%胆盐浓度范围内,该菌株表现出早期适应性与恢复趋势,其6 h相对存活率维持在87.92%~102.22%,12 h相对存活率恢复至86.20%~98.53%,24 h相对存活率稳定在76.67%~85.25%。综上可知,当胆盐浓度≥0.2%时,菌株GRJA008和GRJA012的24 h相对存活率均高于75%,表明这2个菌株均具备优良的体外高胆盐耐受潜能。
图5 菌株GRJA008(A)和GRJA012(B)在不同胆盐浓度培养基中的相对存活率

Fig.5 Relative survival rates of strains GRJA008 (A) and GRJA012 (B) in media with different bile salt concentrations

2.3.4 菌株GRJA008和GRJA012对人工胃肠液的耐受性

表2可知,对于菌株GRJA008,人工肠液孵育3 h后的存活率为98.96%(活菌数约为5.25×10⁵ CFU/mL),人工胃液孵育3 h后及人工胃肠液孵育3 h后均未检出活菌,说明菌株GRJA008对人工胃液不耐受,但对人工肠液有较好的耐受性;对于菌株GRJA012,人工胃液孵育3 h后未检出活菌,人工肠液孵育3 h后的存活率为95.62%(活菌数约为1.07×10⁶ CFU/mL),人工胃肠液孵育3 h后的存活率为93.85%(活菌数约为1.58×10⁴ CFU/mL),说明菌株GRJA012对人工肠液耐受性良好,且能够部分耐受人工胃液和人工肠液的连续作用。
表2 菌株GRJA008和GRJA012在人工胃液、人工肠液和人工胃肠液中的存活率

Table 2 Survival rates of strains GRJA008 and GRJA012 in artificial gastric fluid, artificial intestinal fluid and artificial gastric and intestinal fluids

菌株
Strains
人工消化液
Artificial digestive fluid
耐受时间
Tolerance time/h
活菌数对数值
log10(viable count)
存活率
Survival rate/%


GRJA008

人工胃液Artificial gastric fluid
0 5.49±0.32
3

人工肠液Artificial intestinal fluid
0 5.78±0.04
98.96±1.27
3 5.72±0.05

人工胃肠液Artificial gastric and intestinal fluids
0 4.28±0.02
3


GRJA012

人工胃液Artificial gastric fluid
0 5.74±0.04
3

人工肠液Artificial intestinal fluid
0 6.21±0.21
95.62±3.25
3 6.03±0.09

人工胃肠液Artificial gastric and intestinal fluids
0 4.48±0.01
93.85±0.12
3 4.20±0.00

—:因未检测出活菌,无此数据。

—: no data available because no viable bacteria were detected.

2.3.5 菌株GRJA008和GRJA012的表面疏水性及自凝聚性

表3可知,菌株GRJA008和GRJA012的表面疏水率分别为89.16%和82.00%,自凝聚率分别为69.93%和91.11%,均表现出高度表面疏水性和高自聚集能力。
表3 菌株GRJA008和GRJA012的表面疏水率及自凝聚率

Table 3 Surface hydrophobicity and auto-aggregation rate of strains GRJA008 and GRJA012 %

菌株
Strains
表面疏水率
Surface hydrophobicity
自凝聚率
Auto-aggregation rate
GRJA008 89.16±0.32 69.93±0.93
GRJA012 82.00±0.95 91.11±1.06

表面疏水性标准设定:表面疏水率在50%以上,为高度疏水;表面疏水率在20%~50%,为中度疏水;表面疏水率在20%以下,为非疏水。自凝聚性标准设定:自凝聚率在16%~35%,为低自凝聚能力;自凝聚率在>35%~50%,为中等自凝聚能力;自凝聚率在50%以上,为高自凝聚能力。

Surface hydrophobicity standards were set as follows: a surface hydrophobicity value above 50% was defined as highly hydrophobic, between 20% to 50% as moderately hydrophobic, and below 20% as non-hydrophobic. Auto-aggregation ability standards were set as follows: an auto-aggregation rate of 16% to 35% was defined as low auto-aggregation ability, >35% to 50% as moderate auto-aggregation ability, and above 50% as high auto-aggregation ability.

2.3.6 菌株GRJA008和GRJA012的抑菌活性

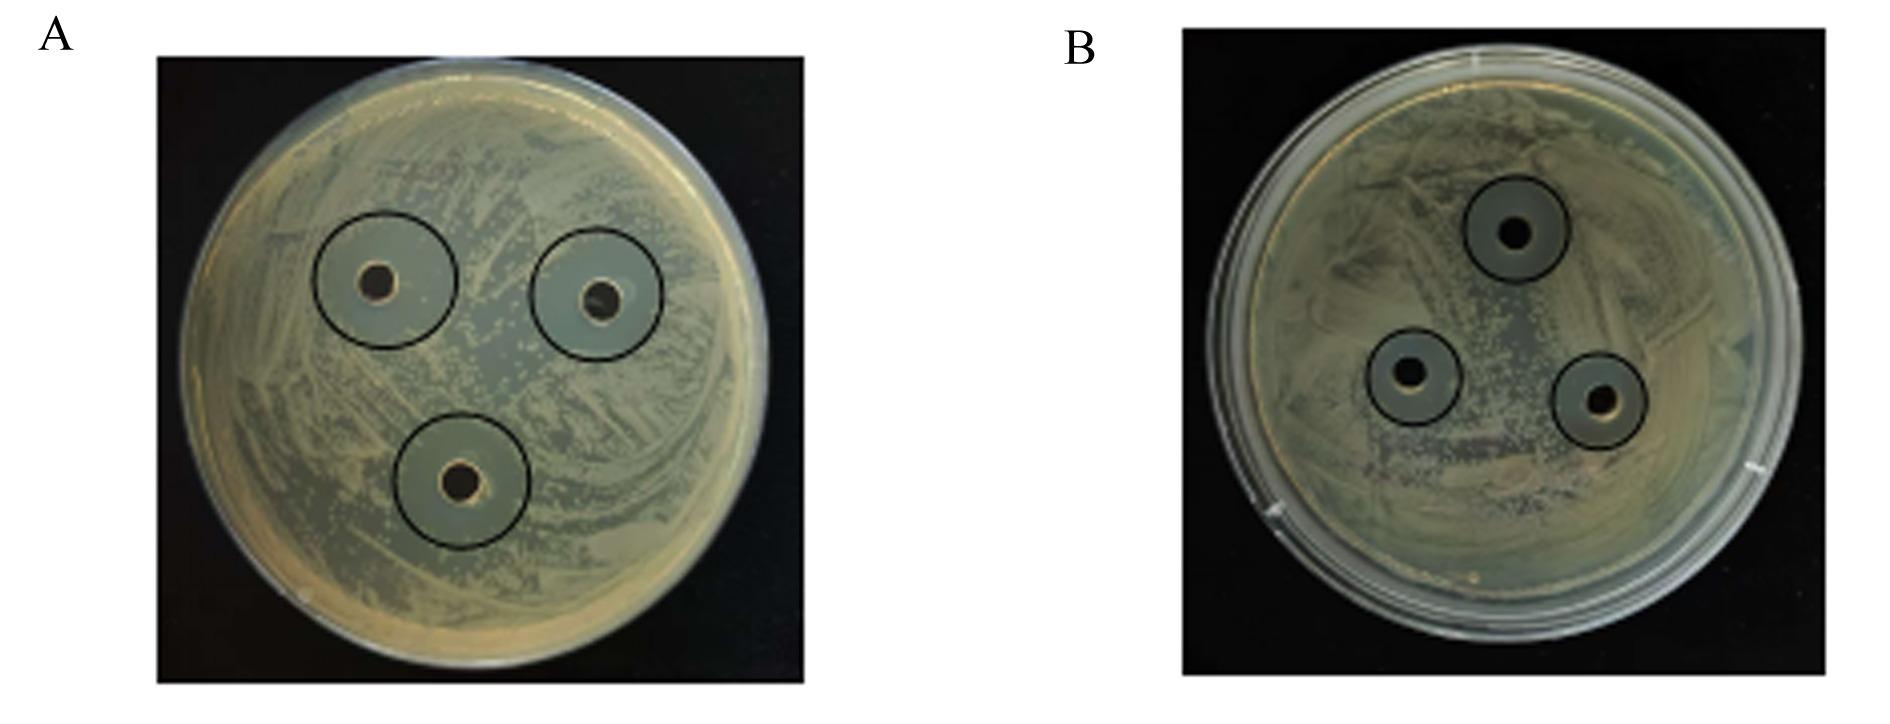
图6表4所示,菌株GRJA008对肠道沙门氏菌、金黄色葡萄球菌均有较好的抑制作用,呈现极敏性能;菌株GRJA012对肠道沙门氏菌、金黄色葡萄球菌无抑制作用。
图6 菌株GRJA008对肠道沙门氏菌(A)、金黄色葡萄球菌(B)的抑菌性能

Fig.6 Antibacterial performance of GRJA008 against Salmonella enterica (A) and Staphylococcus aureus (B)

表4 菌株GRJA008和GRJA012的抑菌活性

Table 4 Antibacterial activities of strains GRJA008 and GRJA012 mm

病原指示菌
Indicator pathogenic bacteria
抑菌圈直径Diameter of inhibition zone
GRJA008 GRJA012
肠道沙门氏菌Salmonella enterica 30.03±1.38 无抑菌圈
金黄色葡萄球菌Staphylococcus aureus 24.51±1.16 无抑菌圈

根据抑菌圈直径(D)判定抑菌活性:D≥20 mm,为极敏;15 mm≤D<20 mm,为高敏;10 mm≤D<15 mm,为中敏;0 mm<D<10 mm,为低敏;无抑菌圈,为无抑菌效果。

The antibacterial activity was determined based on the diameter of the inhibition zone (D): D≥20 mm, indicating extremely sensitive; 15 mm≤D<20 mm, indicating highly sensitive; 10 mm≤D<15 mm, indicating moderately sensitive; 0 mm<D<10 mm, indicating low sensitivity; no inhibition zone, indicating no inhibitory effect.

2.3.7 菌株GRJA008和GRJA012的抗生素敏感性

表5所示,菌株GRJA008和GRJA012对各种常见抗生素的敏感性不同。菌株GRJA008对氯霉素、头孢拉定、头孢哌酮3种常见抗生素表现出敏感,对红霉素、克林霉素、庆大霉素、氨苄西林4种常见抗生素表现出中介,对万古霉素、四环素、阿奇霉素、环丙沙星、青霉素5种常见抗生素表现出不敏感。菌株GRJA012对氯霉素、红霉素、万古霉素、四环素、克林霉素、庆大霉素、头孢拉定、阿奇霉素、环丙沙星、青霉素、氨苄西林、头孢哌酮等12种常见抗生素均表现出不敏感。
表5 菌株GRJA008和GRJA012对常见抗生素的敏感性

Table 5 Sensitivity of strains GRJA008 and GRJA012 to common antibiotics

抗生素名称
Antibiotics names
抑菌圈直径
Inhibition zone diameter/mm
敏感性
Susceptibility
GRJA008 GRJA012 GRJA008 GRJA012
氯霉素Chloramphenicol 20.71±0.84 无抑菌圈 S R
红霉素Erythomycin 15.98±0.60 无抑菌圈 I R
万古霉素Vancomycin 无抑菌圈 无抑菌圈 R R
四环素Tetracycline 13.29±1.09 无抑菌圈 R R
克林霉素Clindamycin 16.22±1.92 无抑菌圈 I R
庆大霉素Gentamycin 12.77±0.99 无抑菌圈 I R
头孢拉定Cefradine 19.95±0.60 无抑菌圈 S R
阿奇霉素Azithromycin 9.06±0.55 无抑菌圈 R R
环丙沙星Ciprofloxacin 无抑菌圈 无抑菌圈 R R
青霉素Penicillin 13.29±0.98 无抑菌圈 R R
氨苄西林Ampicillin 15.30±0.78 无抑菌圈 I R
头孢哌酮Cefoperazone 20.95±1.07 无抑菌圈 S R

R:耐药 resistance;I:中介 intermediate;S:敏感 sensitive。

2.4 菌株GRJA008和GRJA012的代谢特性

2.4.1 代谢组学数据质量评估
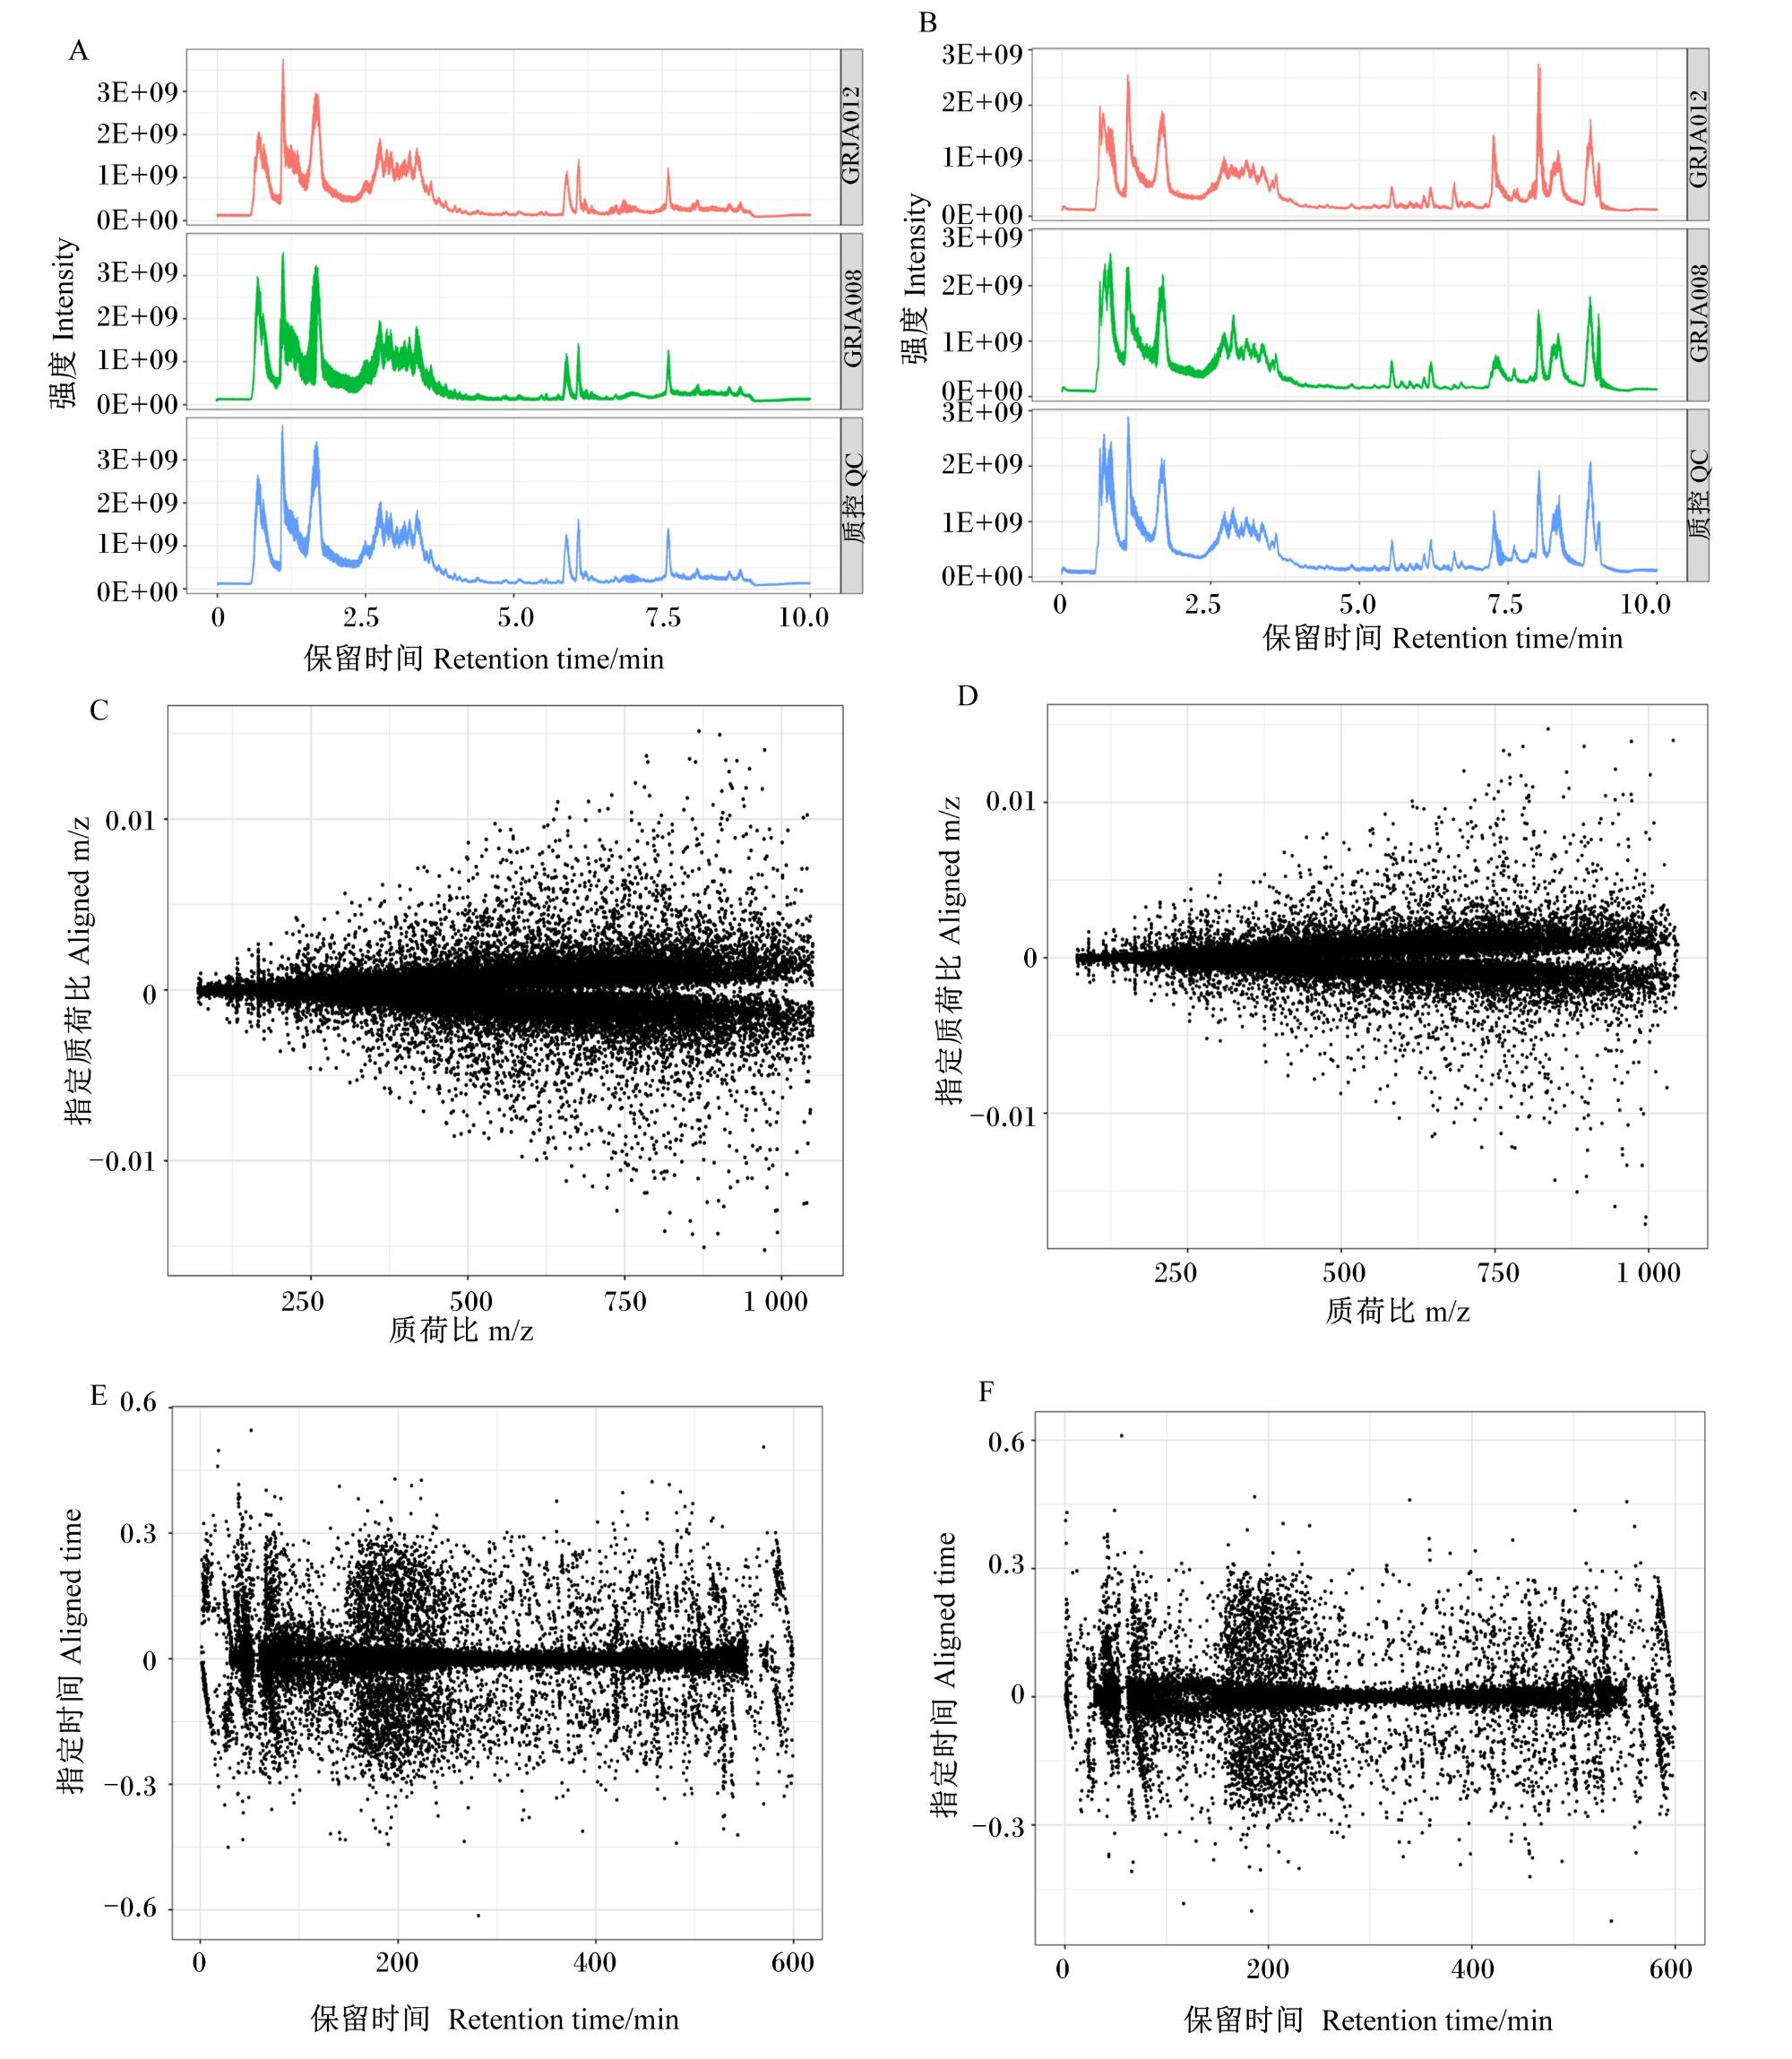
为了评估整个分析过程中仪器系统的稳定性和数据的可靠性,采用正、负离子模式同时采集以保证代谢物覆盖度。图7展示了QC样本在正、负离子模式下的总离子流色谱图(TIC)(正离子模式:图7-A;负离子模式:图7-B)、质荷比分布图(正离子模式:图7-C;负离子模式:图7-D)及保留时间分布图(正离子模式:图7-E;负离子模式:图7-F)。各QC样本的TIC曲线高度重叠,峰形一致,表明仪器响应稳定;质量误差均<5 ppm,无系统偏移;保留时间漂移<0.1 min,色谱分离良好。上述结果表明本次非靶向代谢组学检测过程稳定可靠,数据质量满足后续分析要求。
图7 非靶向代谢组学数据质量评价

A:正离子模式下的总离子流色谱图;B:负离子模式下的总离子流色谱图;C:正离子模式下的质荷比分布图;D:负离子模式下的质荷比分布图;E:正离子模式下的保留时间分布图;F:负离子模式下的保留时间分布图。

Fig.7 Quality evaluation of non-targeted metabolomics data

A: total ion chromatogram in positive ion mode; B: total ion chromatogram in negative ion mode; C: m/z distribution in positive ion mode; D: m/z distribution in negative ion mode; E: retention time distribution in positive ion mode; F: retention time distribution in negative ion mode.

2.4.2 菌株GRJA008和GRJA012的代谢物鉴定

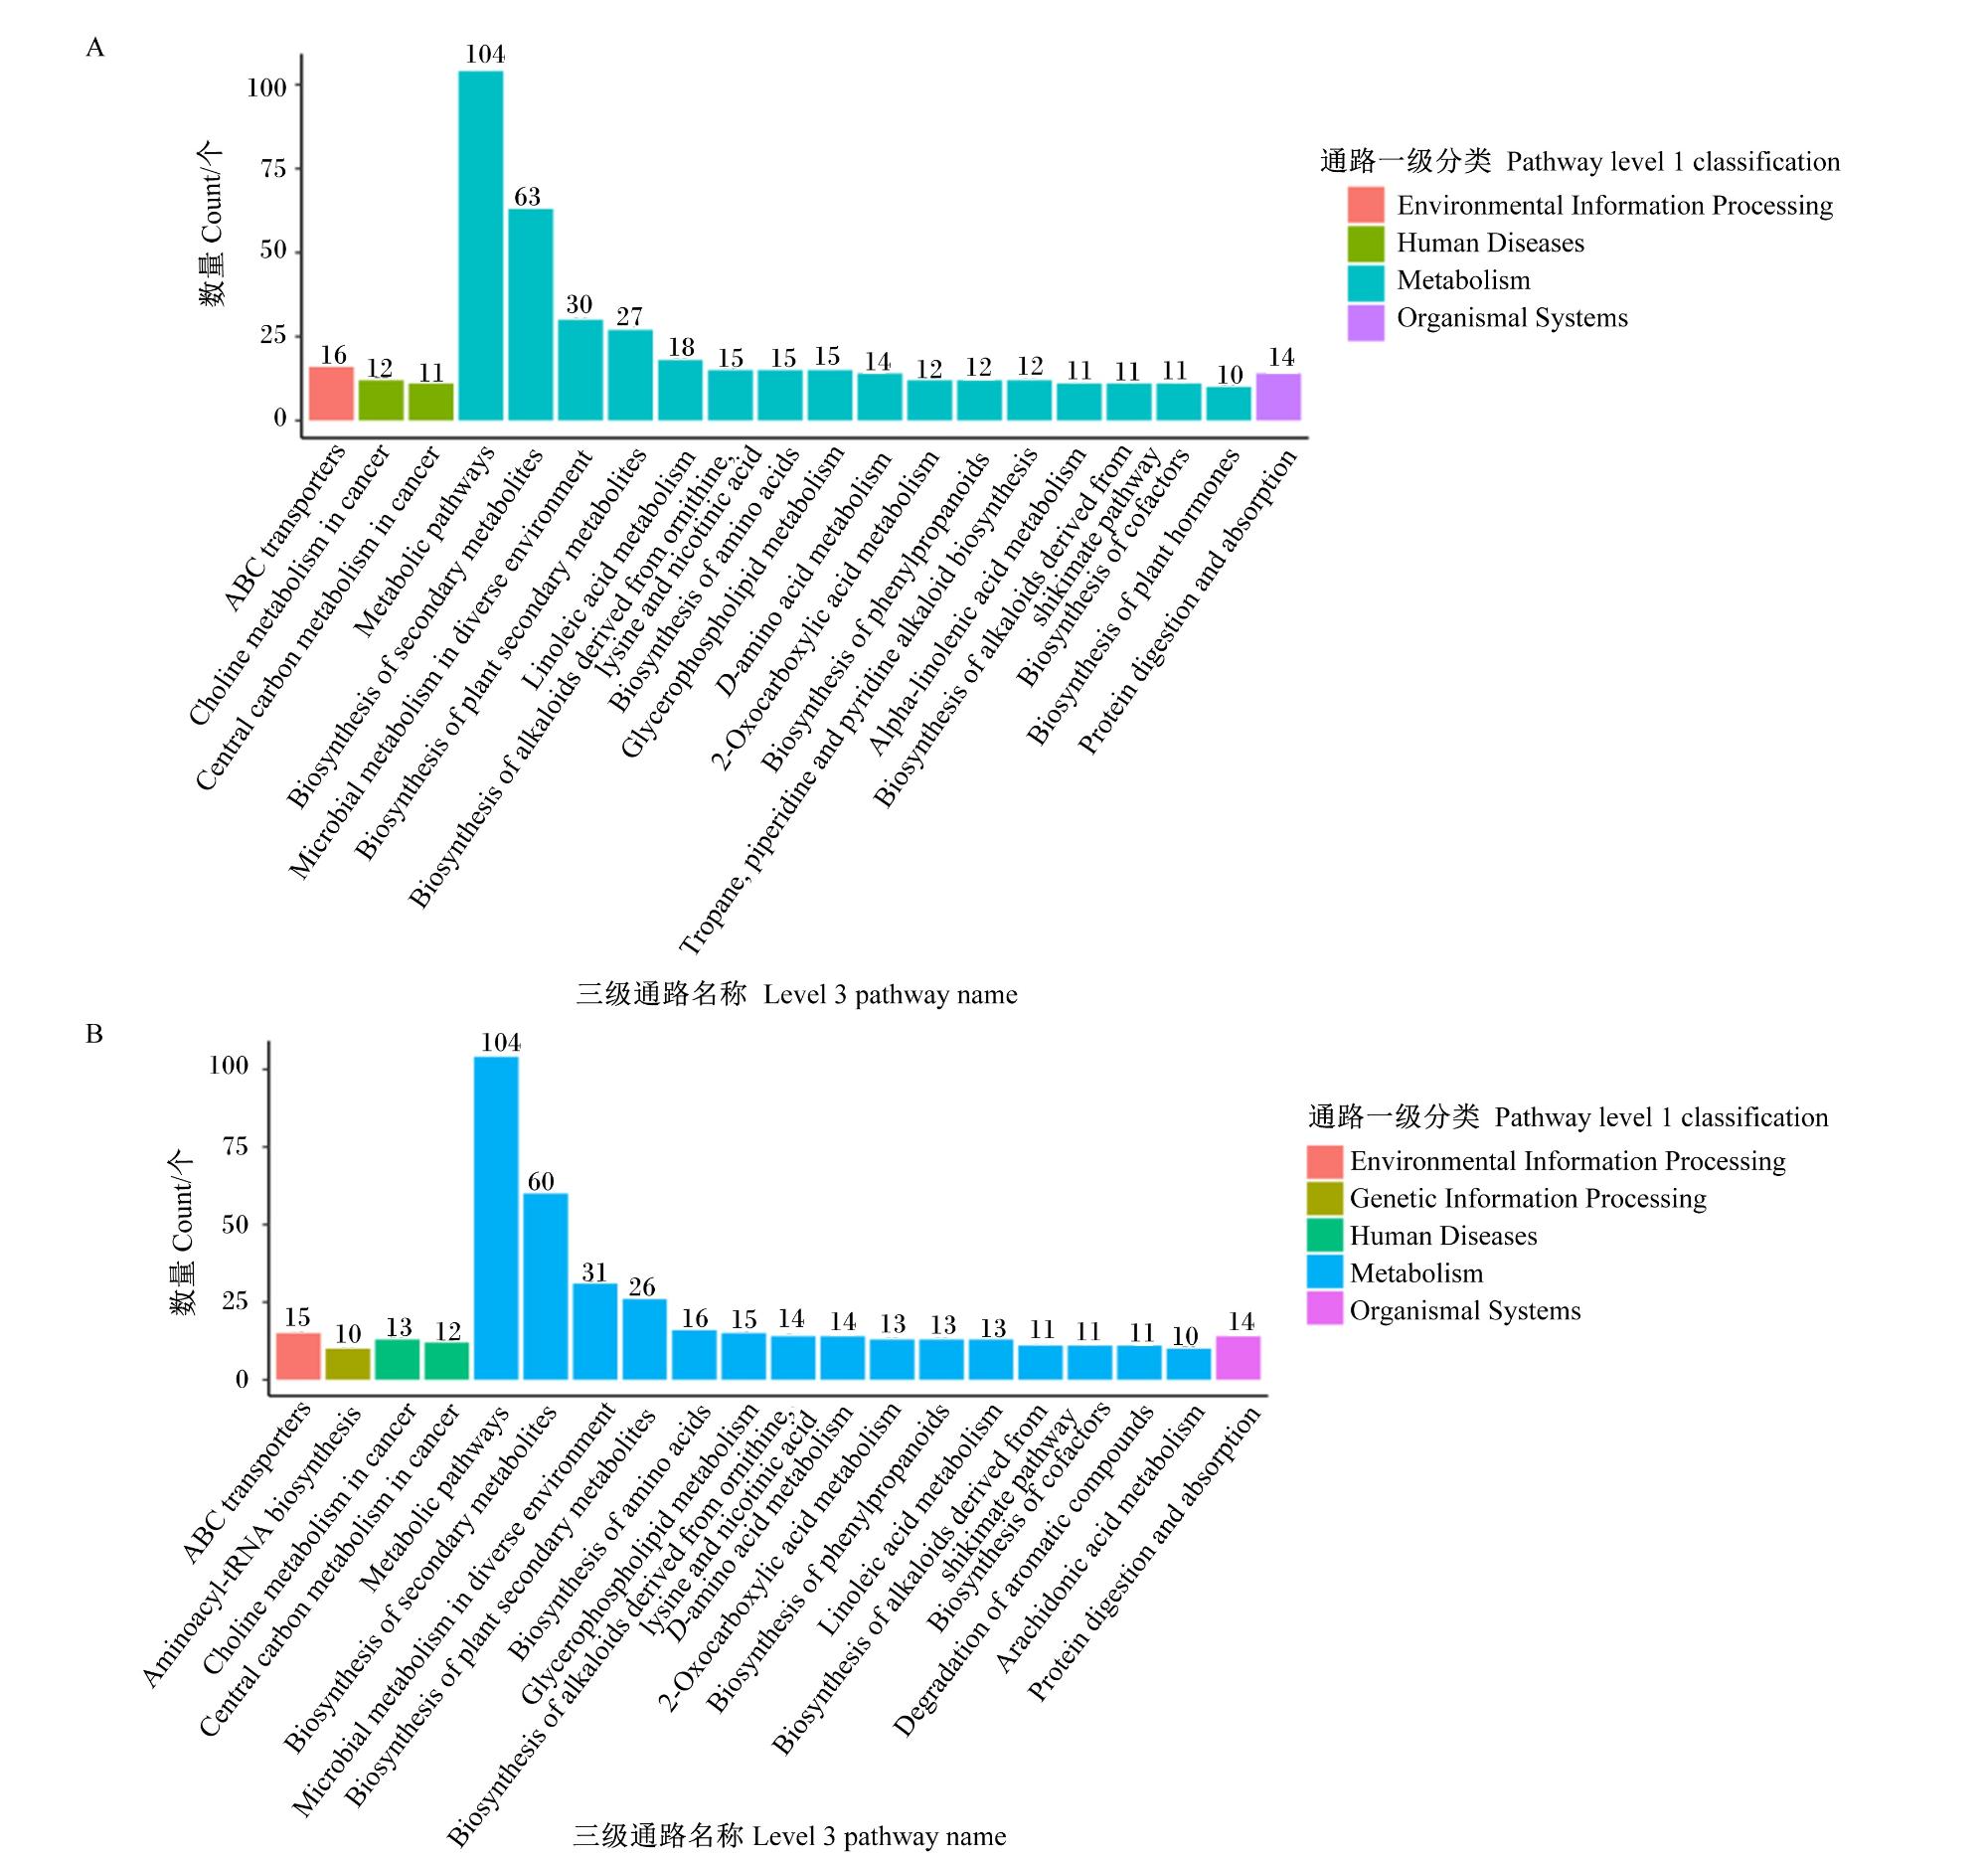
菌株GRJA008(图8-A)与GRJA012(图8-B)的代谢物KEGG通路一级分类均显示,新陈代谢(metabolism)是其最主要的功能类别,占比远高于人类疾病(human diseases)、环境信息处理(environmental information processing)、生物体系统(organismal systems)等其他类别;此外,菌株GRJA012的代谢物中还有10个注释到遗传信息处理(genetic information processing)类别。在三级通路层面,2个菌株的代谢物均显著富集于代谢通路(metabolic pathways)、次生代谢物的生物合成(biosynthesis of secondary metabolites)以及不同环境中的微生物代谢(microbial metabolism in diverse environments)等。
图8 菌株GRJA008(A)和GRJA012(B)代谢物数目排名前20的通路

Environmental Information Processing:环境信息处理;Human Diseases:人类疾病;Metabolism:新陈代谢;Organismal Systems:生物体系统;Genetic Information Processing:遗传信息处理;ABC transporters:ABC转运蛋白;Choline metabolism in cancer:癌症中的胆碱代谢;Central carbon metabolism in cancer:癌症中的中心碳代谢;Metabolic pathways:代谢通路;Biosynthesis of secondary metabolites:次生代谢物的生物合成;Microbial metabolism in diverse environments:不同环境中的微生物代谢;Biosynthesis of plant secondary metabolites:植物次生代谢物的生物合成;Linoleic acid metabolism:亚油酸代谢;Biosynthesis of alkaloids derived from ornithine, lysine and nicotinic acid:源自鸟氨酸、赖氨酸和烟酸的生物碱的生物合成;Biosynthesis of amino acids:氨基酸的生物合成;Glycerophospholipid metabolism:甘油磷脂代谢;D-amino acid metabolism:D-氨基酸代谢;2-Oxocarboxylic acid metabolism:2-氧代羧酸代谢;Biosynthesis of phenylpropanoids:苯丙烷类的生物合成;Tropane, piperidine and pyridine alkaloid biosynthesis:莨菪烷、哌啶和吡啶类生物的碱生物合成;Alpha-linolenic acid metabolism:α-亚麻酸代谢;Biosynthesis of alkaloids derived from shikimate pathway:源自莽草酸途径的生物碱的生物合成;Biosynthesis of cofactors:辅因子的生物合成;Biosynthesis of plant hormones:植物激素的生物合成;Protein digestion and absorption:蛋白质消化与吸收;Aminoacyl-tRNA biosynthesis:氨酰-tRNA生物合成;Degradation of aromatic compounds:芳香族化合物的降解;Arachidonic acid metabolism:花生四烯酸代谢。

Fig.8 Top 20 pathways of metabolite numbers of strains GRJA008 (A) and GRJA012 (B)

为聚焦于与菌株益生特性最相关的代谢功能,对功能导向进行了深入分析,并重点考察了在胆盐、胃肠液耐受及病原菌抑制等方面可能发挥关键作用的代谢通路。对菌株GRJA008的KEGG通路富集分析发现,其代谢物显著富集于脂质代谢网络,特别是在甘油磷脂与脂肪酸的生物合成和转化相关通路中。由表6可知,甘油磷脂代谢(ID:564)是富集程度最高的通路之一,共涉及15种代谢物,包括多种磷脂酰胆碱(PC)、磷脂酰乙醇胺(PE)、磷脂酰丝氨酸(PS)及其衍生物,表明菌株GRJA008具备完整的甘油磷脂合成与代谢能力;同时,脂肪酸的生物合成(ID:61)通路富集了7种代谢物,涵盖了棕榈酸(palmitic acid)、硬脂酸(stearic acid)等饱和脂肪酸以及油酸(oleic acid)等单不饱和脂肪酸;不饱和脂肪酸的生物合成(ID:1040)通路也被显著富集,并将脂肪酸代谢与磷脂代谢联系起来;花生四烯酸代谢(ID:590)、亚油酸代谢(ID:591)和α-亚麻酸代谢(ID:592)等多不饱和脂肪酸代谢通路中均检测到磷脂分子,说明这些多不饱和脂肪酸整合并进入了磷脂膜结构中,成为连接脂肪酸合成与磷脂代谢的关键节点;与脂肪酸延伸、降解以及角质、木栓质合成相关的通路也有代谢物被富集。菌株GRJA012则显著富集于胆汁酸的生物合成和不饱和脂肪酸代谢相关通路。由表7可知,初级胆汁酸的生物合成(ID:120)和次级胆汁酸的生物合成(ID:121)通路分别富集了5和9种代谢物,包括胆酸(cholic acid)、甘胆酸(glycocholic acid)、脱氧胆酸(deoxycholic acid)等多种胆汁酸及其结合物,表明菌株GRJA012具有较强的胆汁酸代谢能力;亚油酸代谢(ID:591)、α-亚麻酸代谢(ID:592)和花生四烯酸代谢(ID:590)通路分别富集了13、9和10种代谢物,涉及多种磷脂分子(如PC)和多不饱和脂肪酸(如亚油酸、α-亚麻酸、花生四烯酸)及其氧化衍生物[如氧代十八碳二烯酸(OxoODE)、环氧十八碳烯酸(EpOME)等];此外,不饱和脂肪酸的生物合成(ID:1040)通路也被显著富集,进一步表明菌株GRJA012在脂肪酸合成与代谢方面表现活跃。这一分化为解释菌株GRJA008和GRJA012在抑菌活性与环境耐受性上的表型差异提供了直接的代谢层面证据。
表6 菌株GRJA008中甘油磷脂与脂肪酸代谢相关KEGG通路富集情况

Table 6 Enrichment of KEGG pathways related to glycerophospholipid and fatty acid metabolism in strain GRJA008

通路编号
Pathway ID
通路名称(三级)
Pathway name (level 3)
代谢物数目
Metabolites number
代表性代谢物
Representative metabolites
591 亚油酸代谢
Linoleic acid metabolism
18 PC(16∶1(9Z)/18∶1(9Z))、PC(34∶2)、PC(16∶1(9Z)/
16∶1(9Z))、PC(36∶1)、PC(14∶0/20∶0)、花生四烯酸、
亚油酸、13-羟基十八碳二烯酸、3-氧代十八碳二烯酸、
9-氧代-10E,12Z-十八碳二烯酸、α-翅果酸、9,10-环氧
十八碳单烯酸、12,13-环氧十八碳单烯酸、9(S)-氢过
氧化-10E,12Z-十八碳二烯酸、9,10-二羟基十八碳单烯酸、
12,13-二羟基十八碳单烯酸、8(R)-氢过氧化亚油酸、
9,12,13-三羟基十八碳单烯酸
564 甘油磷脂代谢
Glycerophospholipid metabolism
15 胆碱、PC(16∶1(9Z)/18∶1(9Z))、PC(34∶2)、PC(16∶1
(9Z)/16∶1(9Z))、PC(36∶1)、PC(14∶0/20∶0)、
PE(P-16∶0/22∶6(4Z,7Z,10Z,13Z,16Z,19Z))、
PE(16∶1(9Z)/22∶4(7Z,10Z,13Z,16Z))、甘油磷酸胆碱、
PS(18∶0/18∶1(9Z))、LysoPC(20∶4/0∶0)、LysoPC(16∶0/
0∶0)、LysoPC(18∶0/0∶0)、LysoPC(20∶1(11Z)/0∶0)、
LysoPC(16∶1/0∶0)
592 α-亚麻酸代谢
Alpha-linolenic acid metabolism
11 PC(16∶1(9Z)/18∶1(9Z))、PC(34∶2)、PC(16∶1
(9Z)/16∶1(9Z))、PC(36∶1)、PC(14∶0/20∶0)、
α-亚麻酸、茉莉酸、亚麻油酸、创伤酸、创伤激素、
乙酸顺式-3-己烯酯
590 花生四烯酸代谢
Arachidonic acid metabolism
9 PC(16∶1(9Z)/18∶1(9Z))、PC(34∶2)、
PC(16∶1(9Z)/16∶1(9Z))、PC(36∶1)、
PC(14∶0/20∶0)、花生四烯酸、前列腺素G2、
11-表-前列腺素F2α、6-酮-前列腺素F1α
61 脂肪酸的生物合成
Fatty acid biosynthesis
7 棕榈酸、油酸、硬脂酸、月桂酸、肉豆蔻酸、
棕榈烯酸、反式棕榈油酸
1040 不饱和脂肪酸的生物合成
Biosynthesis of unsaturated fatty acids
6 花生四烯酸、棕榈酸、油酸、硬脂酸、
亚油酸、α-亚麻酸
73 角质、木栓质和蜡的生物合成
Cutin, suberine and wax biosynthesis
4 棕榈酸、油酸、(S)-10,
16-二羟基十六烷酸、16-羟基十六烷酸
71 脂肪酸降解
Fatty acid degradation
1 棕榈酸
62 脂肪酸伸长率
Fatty acid elongation
1 棕榈酸
1212 脂肪酸代谢
Fatty acid metabolism
1 棕榈酸

PC:磷脂酰胆碱 phosphatidylcholine;PE:磷脂酰乙醇胺 phosphatidylethanolamine;PS:磷脂酰丝氨酸 phosphatidylserine;LysoPC:溶血磷脂酰胆碱 lysophosphatidylcholine。表7同 the same as Table 7

表7 菌株GRJA012中胆汁酸与多不饱和脂肪酸代谢相关KEGG通路富集情况

Table 7 Enrichment of KEGG pathways related to bile acid and polyunsaturated fatty acid metabolism in strain GRJA012

通路编号
Pathway ID
通路名称(三级)
Pathway name (level 3)
代谢物数目
Metabolites number
代表性代谢物
Representative metabolites
591 亚油酸代谢
Linoleic acid metabolism
13 PC(16∶1(9Z)/18∶1(9Z))、PC(16∶1(9Z)/16∶1(9Z))、
PC(34∶2)、PC(14∶0/20∶0)、PC(36∶1)、
花生四烯酸、亚油酸、13-氧代十八碳二烯酸、9-氧代十八
碳二烯酸、α-翅果酸、12,13-环氧十八碳单烯酸、12,13-
二羟基十八碳单烯酸、9,10,13-三羟基十八碳单烯酸
590 花生四烯酸代谢
Arachidonic acid
metabolism
10 PC(16∶1(9Z)/18∶1(9Z))、PC(16∶1(9Z)/16∶1(9Z))、
PC(34∶2)、PC(14∶0/20∶0)、PC(36∶1)、
花生四烯酸、前列腺素G2、11-表-前列腺素F2α、6-
酮-前列腺素F1α、F2-异前列腺素
121 次级胆汁酸的生物合成
Secondary bile acid
biosynthesis
9 胆汁酸、甘胆酸、鹅胆酸、去氧胆酸、牛胆酸、
鹅脱氧胆酸甘氨酸缀合物、胆烷酸、3α,12β-二
羟基-5β-胆烷酸、3β,7α-二羟基-5β-胆烷酸
592 α-亚麻酸代谢
Alpha-linolenic acid metabolism
9 PC(16∶1(9Z)/18∶1(9Z))、PC(16∶1(9Z)/
16∶1(9Z))、PC(34∶2)、PC(14∶0/20∶0)、PC(36∶1)、
α-亚麻酸、亚麻油酸、创伤酸、乙酸顺式-3-己烯酯
1040 不饱和脂肪酸的生物合成
Biosynthesis of unsaturated
fatty acids
7 花生四烯酸、棕榈酸、油酸、硬脂酸、
亚油酸、α-亚麻酸、芥子酸
120 初级胆汁酸的生物合成
Primary bile acid biosynthesis
5 胆汁酸、甘胆酸、鹅胆酸、牛胆酸、
鹅脱氧胆酸甘氨酸缀合物

2.4.3 组间PLS-DA

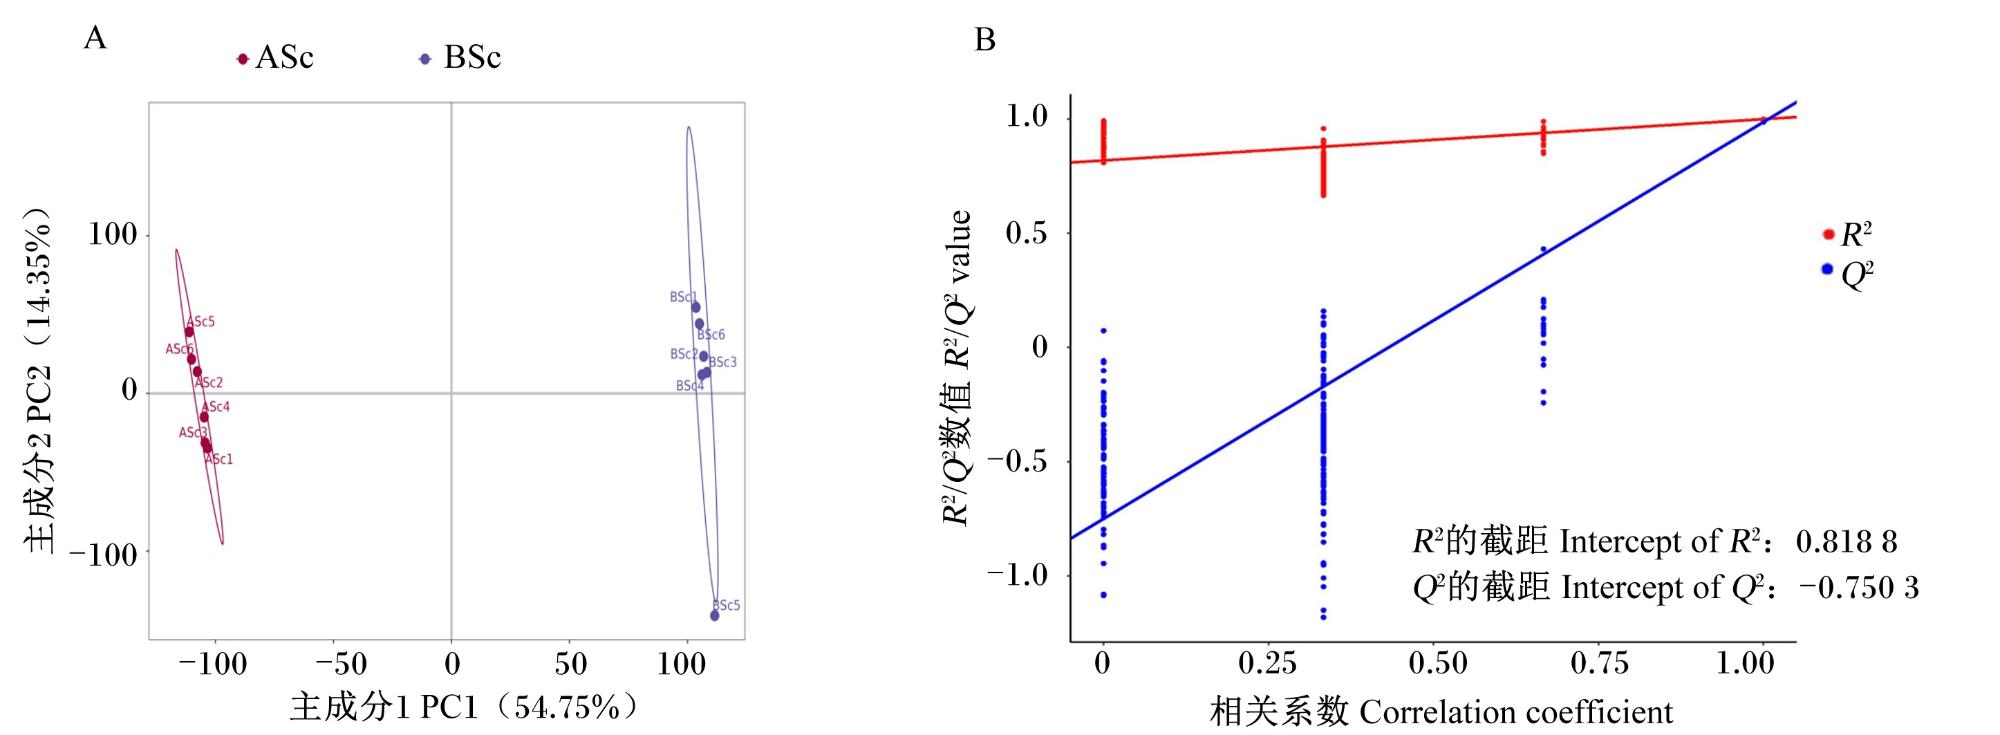
为深入探究菌株GRJA008和GRJA012益生特性差异的代谢基础,采用非靶向代谢组学技术对这2个菌株进行了比较分析。如图9-A所示,菌株GRJA008和GRJA012的代谢物分布存在明显分离。通过200次置换检验对模型进行验证(图9-B),R2回归线(红色)高于Q2回归线(蓝色),且Q2回归线与Y轴截距为负值(Q2截距=-0.750 3),表明原始模型未过拟合,具有良好的稳定性和预测准确性。
图9 PLS-DA图(A)及置换检验图(B)

ASc代表菌株GRJA012,BSc代表菌株GRJA008。

Fig.9 PLS-DA plot (A) and permutation test plot (B)

ASc standed for strain GRJA012, and BSc standed for strain GRJA008.

2.4.4 菌株GRJA008和GRJA012的差异代谢物鉴定和KEGG功能富集分析
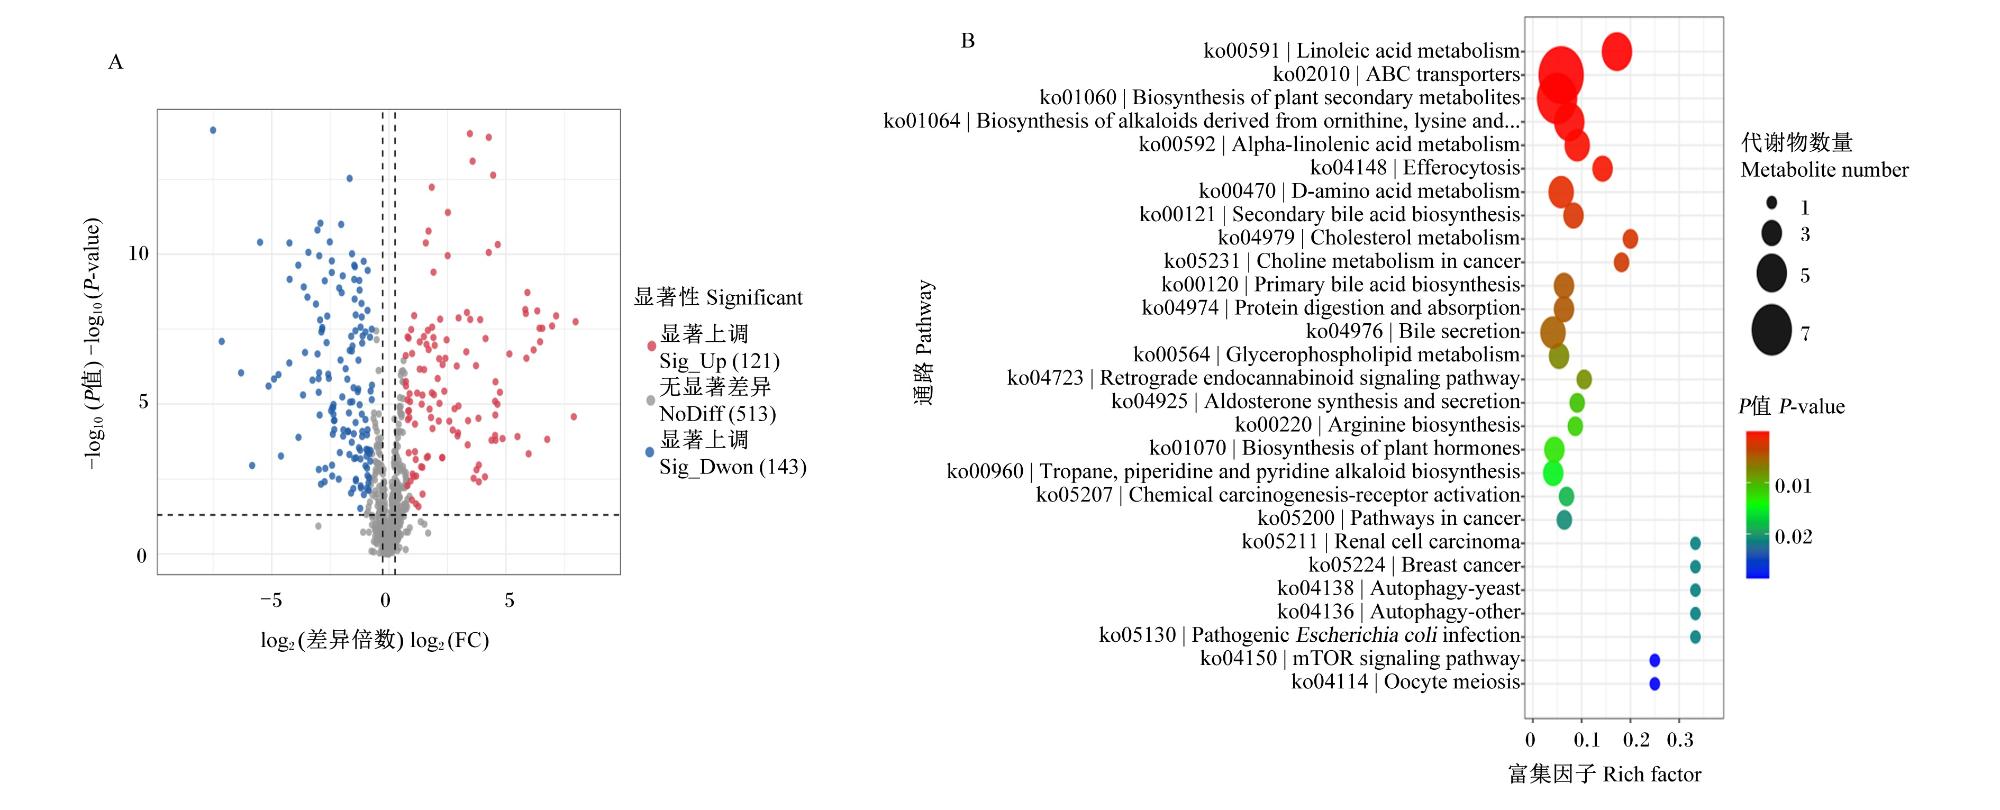
图10-A展示了菌株GRJA008和GRJA012间差异代谢物整体分布的情况。在正、负离子模式下共鉴定到264种差异代谢物(筛选标准:FC≥1.2或FC≤0.83、P<0.05、VIP≥1),其中121种上调,143种下调。表8表9分别列出了正、负离子模式下菌株GRJA008和GRJA012之间P值排名前20的差异代谢物。正离子模式下,溶血磷脂酰乙醇胺(LysoPE)(0∶0/20∶4(5Z,8Z,11Z,14Z))、甘氨脱氧胆酸(glycoursodeoxycholic acid)、溶血磷脂酰胆碱(LysoPC)(17∶0/0∶0)、LysoPE(20∶1(11Z)/0∶0)、胆甾-4,6-二烯-3-酮(cholesta-4,6-dien-3-one)等脂质与固醇类代谢物显著上调;而甲氧基丁香酚(methoxyeugenol)、4-甲氧基苯甲醛(4-methoxybenzaldehyde)、荜茇明碱(piplartine)、孕酮(progesterone)、7-甲氧基-2-甲基异黄酮(7-methoxy-2-methylisoflavone)等酚类与有机酸类代谢物显著下调。负离子模式下,脑羟脂酸(cerebronic acid)、刺桐酚素(cristacarpin)、鳄梨烯醇2-乙酸酯(avocadene 2-acetate)、滨蒿内酯(scoparone)、D6-黄葵内酯(D6-ambrettolide)等代谢物显著上调,而4-羟基丁酸(4-hydroxybutyric acid)、吐叶醇-9-[木糖基-(1→6)-葡萄糖苷](vomifoliol 9-[xylosyl-(1→6)-glucoside])、2-羟基肉豆蔻酸(2-hydroxymyristic acid)、创伤酸(traumatic acid)、1-甲氧基-1H-吲哚-3-羧酸甲酯(methyl 1-methoxy-1H-indole-3-carboxylate)等有机酸与酚类衍生物则显著下调。对排名前20的差异代谢物进行KEGG通路富集分析(图10-B)发现,亚油酸代谢、α-亚麻酸代谢、次级胆汁酸的生物合成、胆固醇代谢等通路被显著富集,提示这些代谢通路可能在菌株GRJA008和GRJA012的益生特性差异中发挥关键作用。
图10 差异代谢物火山图(A)和KEGG富集通路图(B)

Linoleic acid metabolism:亚油酸代谢;ABC transporters:ABC转运蛋白;Biosynthesis of plant secondary metabolites:植物次生代谢物的生物合成;Biosynthesis of alkaloids derived from ornithine, lysine and nicotinic acid:源自鸟氨酸、赖氨酸和烟酸的生物碱的生物合成;Alpha-linolenic acid metabolism:α-亚麻酸代谢;Efferocytosis:胞葬作用;D-amino acid metabolism:D-氨基酸代谢;Secondary bile acid biosynthesis:次级胆汁酸的生物合成;Cholesterol metabolism:胆固醇代谢;Choline metabolism in cancer:癌症中的胆碱代谢;Primary bile acid biosynthesis:初级胆汁酸的生物合成;Protein digestion and absorption:蛋白质消化与吸收;Bile secretion:胆汁分泌;Glycerophospholipid metabolism:甘油磷脂代谢;Retrograde endocannabinoid signaling pathway:逆行内源性大麻素信号通路;Aldosterone synthesis and secretion:醛固酮合成与分泌;Arginine biosynthesis:精氨酸的生物合成;Biosynthesis of plant hormones:植物激素的生物合成;Tropane, piperidine and pyridine alkaloid biosynthesis:莨菪烷、哌啶和吡啶类生物碱的生物合成;Chemical carcinogenesis-receptor activation:化学致癌-受体激活;Pathways in cancer:癌症通路;Renal cell carcinoma:肾细胞癌;Breast cancer:乳腺癌;Autophagy-yeast:自噬-酵母;Autophagy-other:自噬-其他;Pathogenic Escherichia coli infection:致病性大肠杆菌感染;mTOR signaling pathway:mTOR信号通路;Oocyte meiosis:卵母细胞减数分裂。

Fig.10 Volcano plot of differential metabolites (A) and KEGG enrichment pathway diagram (B)

表8 正离子模式下菌株GRJA008和GRJA012间的差异代谢物(前20)

Table 8 Differential metabolites between strains GRJA008 and GRJA012 in positive ion mode (top 20)

差异代谢物
Differential metabolites
变量投影重要性
VIP
调节
Regulated
P
P-value
甲氧基丁香酚Methoxyeugenol 1.24 0.026
1,1'-[1,12-十二烷二基双(氧)]双苯
1,1'-[1,12-dodecanediylbis(oxy)]bisbenzene
1.11 0.016
4-甲氧基苯甲醛4-methoxybenzaldehyde 1.16 0.011
荜茇明碱Piplartine 1.30 0.009
孕酮Progesterone 1.29 0.007
7-甲氧基-2-甲基异黄酮
7-methoxy-2-methylisoflavone
1.16 0.005
3-(3,4,5-三甲氧基苯基)丙酸
3-(3,4,5-trimethoxyphenyl)propanoic acid
1.00 0.005
4-(乙氧基甲基)-2-甲氧基苯酚
4-(ethoxymethyl)-2-methoxyphenol
3.09 4.26E-03
溶血磷脂酰乙醇胺(0∶0/20∶4(5Z,8Z,11Z,14Z))
LysoPE(0∶0/20∶4(5Z,8Z,11Z,14Z))
3.05 3.92E-03
甘氨脱氧胆酸Glycoursodeoxycholic acid 3.04 3.68E-03
2-呋喃甲酸戊酯Amyl 2-furoate 2.97 3.62E-03
法卡林二酮Falcarindione 2.92 3.23E-03
5-羟基-2-(5-甲基-1-氧代-4-己烯基)苯并呋喃
5-hydroxy-2-(5-methyl-1-oxo-4-hexenyl)benzofuran
2.88 3.20E-03
溶血磷脂酰胆碱(17∶0/0∶0)
LysoPC(17∶0/0∶0)
2.70 2.99E-03
溶血磷脂酰乙醇胺(20∶1(11Z)/0∶0)LysoPE(20∶1(11Z)/0∶0) 2.42 2.67E-03
胆甾-4,6-二烯-3-酮Cholesta-4,6-dien-3-one 2.40 1.55E-03
N-甲氧羰基-N-去甲荷叶碱N-methoxycarbonyl-N-nornuciferine 1.86 1.52E-03
2-(2-甲基丙氧基)萘2-(2-methylpropoxy)naphthalene 1.75 1.40E-03
4-(丁氧基甲基)-2-甲氧基苯酚4-(butoxymethyl)-2-methoxyphenol 1.05 1.37E-03
胆酸Cholic acid 1.41 1.28E-03

↓:显著下调 significantly downregulated;↑:显著上调 significantly upregulated。表9同 the same as Table 9

表9 负离子模式下菌株GRJA008和GRJA012间的差异代谢物(前20)

Table 9 Differential metabolites between strains GRJA008 and GRJA012 in negative ion mode (top 20)

差异代谢物
Differential metabolites
变量投影重要性
VIP
调节
Regulated
P
P-value
4-羟基丁酸4-hydroxybutyric acid 1.01 0.030
脑羟脂酸Cerebronic acid 1.02 0.021
刺桐酚素Cristacarpin 1.19 0.010
吐叶醇-9-[木糖基-(1→6)-葡萄糖苷] Vomifoliol 9-[xylosyl-(1→6)-glucoside] 1.05 0.008
2-羟基肉豆蔻酸2-hydroxymyristic acid 1.02 0.006
5-己基四氢-2-呋喃辛酸5-hexyltetrahydro-2-furanoctanoic acid 1.28 0.006
磷脂酰乙醇胺(20∶4(5Z,8Z,11Z,14Z)/18∶1(11Z))
PE(20∶4(5Z,8Z,11Z,14Z)/18∶1(11Z))
2.04 0.005
创伤酸Traumatic acid 1.98 0.004
安诺切林A Annocherin A 1.02 0.003
鳄梨烯醇2-乙酸酯Avocadene 2-acetate 1.10 0.003
4-羟基-(3',4'-二羟基苯基)戊酸
4-hydroxy-(3',4'-dihydroxyphenyl)-valeric acid
1.26 0.003
磷脂酰肌醇(18∶0/18∶2(9Z,12Z)) PI(18∶0/18∶2(9Z,12Z)) 1.65 0.003
利卡林C Licarin C 1.02 0.002
滨蒿内酯Scoparone 1.16 0.002
D6-黄葵内酯D6-ambrettolide 1.27 0.001
4,5-二氢荜茇明宁碱4,5-dihydropiperlonguminine 1.13 0.001
1-甲氧基-1H-吲哚-3-羧酸甲酯
Methyl 1-methoxy-1H-indole-3-carboxylate
3.30 0.001
15-乙酰氧基疣孢青霉烯-3,4-二醇4-O-α-D-吡喃葡萄糖苷
15-acetoxyscirpene-3,4-diol 4-O-a-D-glucopyranoside
1.00 8.01E-04
10-氧代-11-十八碳烯-13-交酯10-oxo-11-octadecen-13-olide 1.18 7.05E-04
烟酸Nicotinic acid 1.22 6.76E-04

2.4.5 菌株GRJA008和GRJA012的差异代谢物相关性热图与网络图分析
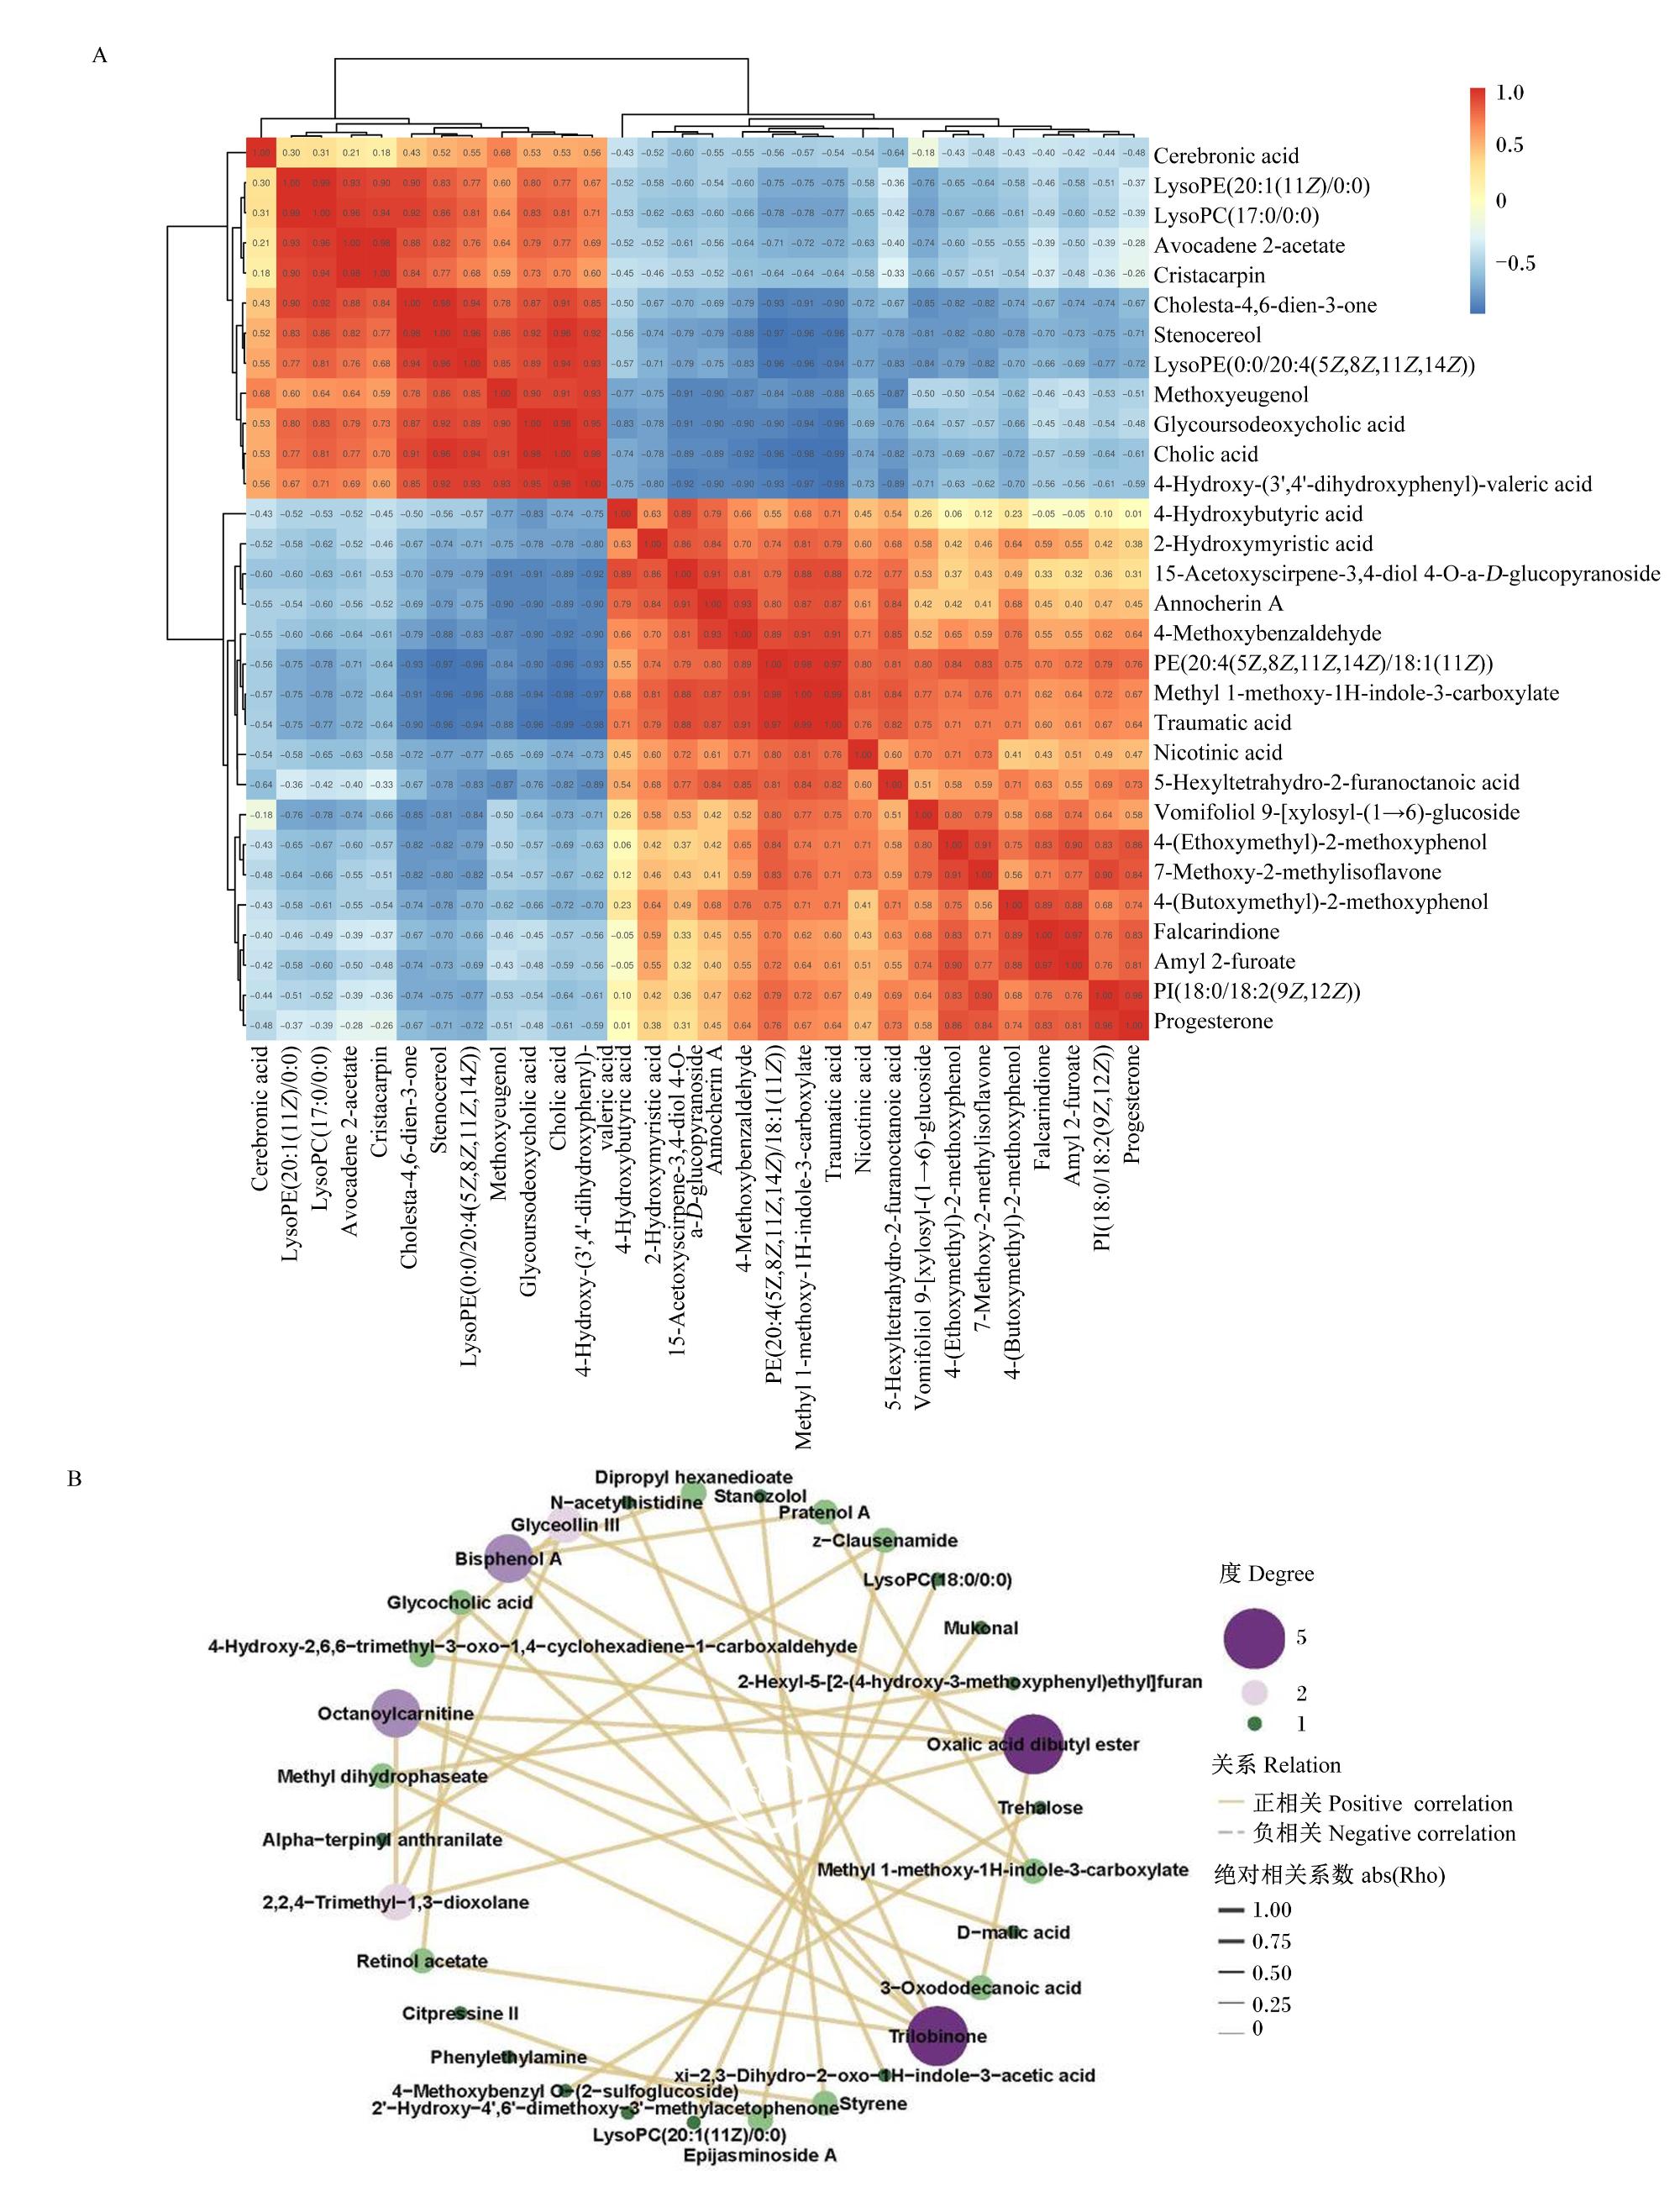
为进一步探究差异代谢物之间的内在联系,对264种差异代谢物进行Pearson相关性分析,计算代谢物间丰度的相关系数及其显著性P值。基于分析结果,选取显著性P值排名前30的代谢物绘制相关性热图;选取相关性P值排名前30对关联代谢物绘制网络图。相关性热图(图11-A)显示,脂质与固醇类代谢物[如LysoPC(17∶0/0∶0)、LysoPE(20∶1(11Z)/0∶0)、脑羟脂酸、胆甾-4,6-二烯-3-酮]之间呈正相关,表明这些物质在菌株间协同上调,可能与细胞膜脂合成或固醇代谢增强有关;而胆汁酸类及酚类衍生物(如甘氨脱氧胆酸、甲氧基丁香酚)则聚集为蓝色负相关区域,其表达水平普遍下调,表明其次级胆汁酸合成与苯丙烷代谢途径可能受到抑制。“脂质-固醇代谢”与“胆汁酸-酚类”这2个代谢簇间的平均相关系数约为-0.7,说明二者存在明显的拮抗关系。网络图则进一步从系统层面验证了这一拮抗现象。如图11-B所示,草酸二丁酯(oxalic acid dibutyl ester)和trilobinone为连接度最高的核心节点,它们与脂质-固醇类代谢物[如维生素A乙酸酯(retinol acetate)、辛酰肉碱(octanoylcarnitine)]呈强正相关,而与酚类、有机酸类代谢物[如苯乙胺(phenylethylamine)、D-苹果酸(D-matic acid)、创伤酸]则多呈负相关。该拓扑结构表明这2个核心代谢物可能在调控菌株GRJA008和GRJA012代谢表型差异中发挥关键作用,为后续进一步挖掘菌株差异代谢的关键调控节点提供了依据。
图11 差异代谢物相关性热图(A)与网络图(B)

Cerebronic acid:脑羟脂酸;LysoPE(20∶1(11Z)/0∶0):溶血磷脂酰乙醇胺(20∶1(11Z)/0∶0);LysoPC(17∶0/0∶0):溶血磷脂酰胆碱(17∶0/0∶0);Avocadene 2-acetate:鳄梨烯2-乙酸酯;Cristacarpin:刺桐酚素;Cholesta-4,6-dien-3-one:胆甾-4,6-二烯-3-酮;LysoPE(0∶0/20∶4(5Z,8Z,11Z,14Z)):溶血磷脂酰乙醇胺(0∶0/20∶4(5Z,8Z,11Z,14Z));Methoxyeugenol:甲氧基丁香酚;Glycoursodeoxycholic acid:甘氨脱氧胆酸;Cholic acid:胆酸;4-Hydroxy-(3',4'-dihydroxyphenyl)-valeric acid:4-羟基-(3',4'-二羟基苯基)-戊酸;4-Hydroxybutyric acid:4-羟基丁酸;2-Hydroxymyristic acid:2-羟基肉豆蔻酸;15-Acetoxyscirpene-3,4-diol 4-O-a-D-glucopyranoside:15-乙酰氧基疣孢青霉烯-3,4-二醇4-O-α-D-葡萄糖吡喃苷;Annocherin A:安诺切林A;4-Methoxybenzaldehyde:4-甲氧基苯甲醛;PE(20∶4(5Z,8Z,11Z,14Z)/18∶1(11Z)):磷脂酰乙醇胺(20∶4(5Z,8Z,11Z,14Z)/18∶1(11Z));Methyl 1-methoxy-1H-indole-3-carboxylate:1-甲氧基-1H-吲哚-3-羧酸甲酯;Traumatic acid:创伤酸;Nicotinic acid:烟酸;5-Hexyltetrahydro-2-furanoctanoic acid:5-己基四氢-2-呋喃辛酸;Vomifoliol 9-[xylosyl-(1→6)-glucoside]:呕吐醇9-[木糖基-(1→6)-葡萄糖苷];4-(Ethoxymethyl)-2-methoxyphenol:4-(乙氧甲基)-2-甲氧基苯酚;7-Methoxy-2-methylisoflavone:7-甲氧基-2-甲基异黄酮;4-(Butoxymethyl)-2-methoxyphenol:4-(丁氧甲基)-2-甲氧基苯酚;Falcarindione:法卡林二酮;Amyl 2-furoate:2-呋喃甲酸戊酯;PI(18∶0/18∶2(9Z,12Z)):磷脂酰肌醇(18∶0/18∶2(9Z,12Z));Progesterone:孕酮;2,2,4-Trimethyl-1,3-dioxolane:2,2,4-三甲基-1,3-二氧戊烷;2-Hexyl-5-[2-(4-hydroxy-3-methoxyphenyl)ethyl]furan:2-己基-5-[2-(4-羟基-3-甲氧基苯基)乙基]呋喃;2'-Hydroxy-4',6'-dimethoxy-3'-methylacetophenone:2'-羟基-4',6'-二甲氧基-3'-甲基苯乙酮;3-Oxododecanoic acid:3-氧代十二烷酸;4-Hydroxy-2,6,6-trimethyl-3-oxo-1,4-cyclohexadiene-1-carboxaldehyde:4-羟基-2,6,6-三甲基-3-氧代-1,4-环己二烯-1-甲醛;4-Methoxybenzyl O-(2-sulfoglucoside):4-甲氧基苄基O-(2-磺酰葡萄糖苷);Alpha-terpinyl anthranilate:α-松油基邻氨基苯甲酸酯;Bisphenol A:双酚A;Dipropyl hexanedioate:己二酸二丙酯;D-malic acid:D-苹果酸;Glyceollin Ⅲ:甘油醇Ⅲ;Glycocholic acid:甘胆酸;LysoPC(18∶0/0∶0):溶血磷脂酰胆碱(18∶0/0∶0);LysoPC(20∶1(11Z)/0∶0):溶血磷脂酰胆碱(20∶1(11Z)/0∶0);Methyl 1-methoxy-1H-indole-3-carboxylate:甲基1-甲氧基-1H-吲哚-3-甲酸甲酯;N-acetylhistidine:N-乙酰组氨酸;Octanoylcarnitine:辛酰肉碱;Oxalic acid dibutyl ester:草酸二丁酯;Phenylethylamine:苯乙胺;Retinol acetate:乙酸视黄醇;Stanozolol:司坦唑醇;Trehalose:海藻糖;xi-2,3-Dihydro-2-oxo-1H-indole-3-acetic acid:xi-2,3-二氢-2-氧代-1H-吲哚-3-乙酸;z-Clausenamide:z-黄皮酰胺。

Fig.11 Heatmap (A) and network diagram (B) of differential metabolite correlations

3 讨论

3.1 菌株GRJA008和GRJA012的胃肠道耐受性、定植潜能与功能安全性

微生物生长通常会经历迟缓期、对数期、稳定期、衰亡期4个时期,其中迟缓期是微生物适应新环境的关键过渡期。迟缓期越短,菌株适应能力越强,生长速度更快。Wang等[19]从湖羊瘤胃液中分离的天然酵母菌,其在接种后8 h进入对数生长期。本试验中,菌株GRJA008和GRJA012分别在接种后4和6 h即可进入对数生长期,并且稳定期活菌数较高,表明2个菌株均具有较高的生长速度和繁殖能力;菌株GRJA008和GRJA012均具有产酸能力,终末pH分别在4.17~4.19和4.94~5.00,表明其可通过降低环境pH抑制病原菌生长,增强在低pH环境下的存活能力与益生功能。益生菌能否顺利通过胃肠道成功定植并发挥益生作用主要取决于该菌株对低pH环境、胃肠液及胆盐的耐受能力[20]。本研究发现,菌株GRJA012表现出较强的人工胃肠液连续耐受性,而菌株GRJA008虽对人工胃液敏感,但对人工肠液耐受性良好。这表明,菌株GRJA012可能更易于以活菌形式通过胃部酸性环境,这为其在肠道中定植并发挥益生作用提供了有利条件;而菌株GRJA008的应用则可能需要通过微胶囊化包被技术或饲粮缓冲等策略提高其过瘤胃存活率。表面疏水性可反映出菌株对肠道细胞的吸附力[21],自凝聚性则关乎生物膜形成[22],二者常被用于间接评估益生菌肠道定植能力。本研究中,菌株GRJA008和GRJA012均表现出高自凝聚性和高表面疏水性,表明2个菌株均具备优良的肠道上皮黏附与定植潜力,这与张璐等[23]和黄姚等[24]的研究结果一致。
菌株是否对抗生素敏感(无耐药性)以及能否有效抑制病原菌生长(强抑菌性),是益生菌安全性与功能性评价的关键指标[25]。沙门氏菌和金黄色葡萄球菌是常见病原菌,在本试验中菌株GRJA008对沙门氏菌和金黄色葡萄球菌展现出较强的抑菌活性,这与研究报道中酵母菌通过竞争性抑制[26]或分泌抗菌物质[27]来抑制病原菌吸附和定植的机制相符;而菌株GRJA012未表现出抑菌活性,与赵香帅[28]研究结果一致,其益生机制可能更多体现在营养竞争、生态位占据以及免疫调节等方面,这也与Igbafe等[29]的报道相符。本试验中菌株GRJA008的耐药谱较窄,表明该菌株具有较好的抗生素敏感性,与刘周靓等[30]筛选得到的多株优良益生酵母菌的特性一致。值得注意的是,菌株GRJA012对测试的12种常见抗生素均不敏感,这与姚志芳等[31]的研究结果一致,主要是由于酵母菌缺乏细菌肽聚糖细胞壁且其核糖体结构与细菌存在显著差异[32-33]。然而,该耐药性由染色体编码,目前尚未有证据表明能通过水平基因转移传播给肠道病原菌[34],因此其生物安全风险较低,反而为其在抗生素相关肠道菌群紊乱治疗中应用提供了潜在优势。

3.2 菌株GRJA008和GRJA012的代谢表型差异及其与益生特性的关联

通过非靶向代谢组学分析,本试验从代谢物层面探讨了菌株GRJA008和GRJA012表型差异的内在原因。2个菌株之间共鉴定出264种差异代谢物,主要富集于脂质代谢、固醇代谢、胆汁酸生物合成等通路。虽然菌株GRJA008和GRJA012同为酿酒酵母,但却表现出不同的代谢特征,这可能与其各自适应不同宿主环境有关。具体来看,菌株GRJA008在甘油磷脂代谢和脂肪酸生物合成通路上显著富集,这为其快速的膜合成与细胞增殖提供了物质基础,同时也可能直接贡献于其抑菌活性[6]。一个有趣的现象是,尽管脂质的过量积累通常会抑制微生物生长,但菌株GRJA008在脂质代谢高度活跃的同时,依然保持了较快的生长速度。据此推测,这一特性可能源于其高效的代谢分流机制:一方面,该菌株能够将新合成的脂质前体(如棕榈酸、油酸)迅速整合入膜磷脂(如PC、PE),从而支持细胞的生长与增殖;另一方面,它还能将部分前体定向转化为具有抗菌活性的次级代谢产物,如本研究中鉴定出的月桂酸、肉豆蔻酸及多种LysoPE。这些物质的合成与分泌,不仅可能直接抑制病原菌的生长,还有助于避免潜在毒性中间产物在胞内积累,从而维持细胞内的代谢稳态。这可能是菌株GRJA008对瘤胃脂质环境的一种适应性演化特征。此外,该菌株对多种抗生素表现出敏感性,这为其在实际应用中的生物安全性提供了有利保障。相反,菌株GRJA012显著富集于胆汁酸与酚类化合物代谢相关通路,包括初级与次级胆汁酸生物合成以及苯丙烷代谢途径,这可能是其适应复杂消化道环境的重要策略。酚类化合物通常作为抗氧化剂或应激保护物质,有助于细胞抵御氧化损伤[35];而胆汁酸代谢通路的富集则暗示该菌株具备独特的胆盐代谢与转化能力,这可能是其表现出优异胆盐耐受性及人工胃肠液耐受性的内在因素之一。通过这些代谢途径的调节,菌株GRJA012能够更好地应对pH与胆盐浓度的波动,从而在营养复杂的瘤胃环境中节约能量、实现长期定植。这一代谢特征也与其更宽的pH适应范围和极强的人工胃肠液耐受性结果相一致。
此外,菌株GRJA008和GRJA012代谢表型的显著差异可能与其不同宿主来源有关。菌株GRJA008分离自海福特母牛,海福特牛作为肉用品种,其瘤胃环境可能更倾向于促进快速生长和能量储存的微生物代谢模式;菌株GRJA012分离自小尾寒羊公羊,小尾寒羊作为耐粗饲的绵羊品种,其瘤胃微生物可能需应对复杂的膳食纤维和次级代谢产物,从而进化出更强的胁迫耐受与胆汁酸代谢能力。不同反刍动物瘤胃微环境(如pH、营养成分、微生物群落结构)的差异,可能对定居其中的酵母菌代谢途径形成了长期的自然选择,导致其在相同培养条件下仍表现出不同的代谢倾向。相关性网络分析进一步说明“脂质-固醇代谢”与“胆汁酸-酚类代谢”两大代谢簇间存在明显拮抗关系。这一现象从代谢网络层面证明,即使同种酿酒酵母,因宿主来源不同,其代谢网络会发生适应性重塑,进而驱动其益生功能的分化,这为实现“菌株-功能-应用场景”的精准匹配提供了代谢层面的理论依据,未来研究可通过比较基因组学或转录组学,进一步解析这2类代谢模块的遗传调控基础。

3.3 菌株GRJA008和GRJA012的潜在应用场景与展望

综合体外益生特性与代谢组学比较分析,菌株GRJA008和GRJA012展现出差异化的应用潜力。菌株GRJA008的抑菌活性强,抗生素敏感性较高,在抑制沙门氏菌、金黄色葡萄球菌等肠道致病菌方面表现突出,揭示其具有开发为靶向益生菌制剂的潜力,可用于预防或辅助治疗反刍幼畜应激或免疫力低下的细菌性肠炎,由于其对多种抗生素敏感,未来研究可探索其与特定抗生素联用的可能性;而菌株GRJA012凭借其优异的人工胃肠液耐受性、较宽的pH适应范围和广泛的抗生素耐药性,能够高效通过消化道并实现成功定植,显示出作为日常饲用益生菌的优势,适用于长期改善肠道健康、稳定瘤胃微生态、提高饲料利用率。这2株菌在功能上具有互补性,体现了瘤胃微生物资源的功能多样性。本研究从表型到代谢机制的多层次比较,初步建立了“宿主微环境-代谢适应性-益生功能”的关联框架。这为超越传统的表型筛选,实现基于代谢特征的益生菌精准设计与应用提供了新思路。后续研究将重点通过体内试验验证这2株菌在反刍家畜中的实际益生效果、作用机制及其对宿主健康与生产性能的影响,以推动其产业化应用。

4 结论

本研究从反刍家畜瘤胃液中分离得到2株酿酒酵母GRJA008和GRJA012,均具有良好的体外益生潜力,但二者在人工胃肠液耐受性、抑菌活性与抗生素敏感性方面表现出较大差异。代谢组学分析表明,这2个菌株的益生功能差异源于其核心代谢路径的分化:菌株GRJA008侧重于脂质-固醇代谢,与其快速生长与抑菌能力相关;而菌株GRJA012调整胆汁酸-酚类代谢,可能增强其在复杂胃肠道环境中的耐受与定植能力。相关性分析进一步表明这两大代谢模块之间存在显著拮抗关系,从代谢层面阐释了菌株功能分化的内在机制。综上可知,本研究不仅为反刍家畜益生菌开发提供了差异化候选菌株,更从代谢物层面初步建立了“宿主微环境-代谢适应性-益生功能”之间的关联框架,为未来功能导向的益生菌精准设计与应用提供了新视角。
[1]
MATTHEWS C, CRISPIE F, LEWIS E, et al. The rumen microbiome:a crucial consideration when optimising milk and meat production and nitrogen utilisation efficiency[J]. Gut Microbes, 2019, 10(2):115-132.

DOI

[2]
赵志飞, 徐宏建, 李建国, 等. 消化道微生物及其与宿主互作影响奶牛饲料效率的研究进展[J]. 动物营养学报, 2025, 37(4):2189-2199.

DOI

ZHAO Z F, XU H J, LI J G, et al. Research progress on impacts of gastrointestinal microbiota and host-microbe interactions on dairy cow feed efficiency[J]. Chinese Journal of Animal Nutrition, 2025, 37(4):2189-2199. (in Chinese)

DOI

[3]
祝欣悦, 马建飞, 包俊杰, 等. 体外产气法评价饲粮添加复合菌酶制剂对肉牛瘤胃发酵特性、纤维素降解酶和菌群的影响[J]. 动物营养学报, 2025, 37(1):412-425.

DOI

ZHU X Y, MA J F, BAO J J, et al. Evaluation of effects of dietary complex bacterial enzyme preparation on rumen fermentation characteristics,cellulose degrading enzymes and microflora of beef cattle by in vitro gas production method[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):412-425. (in Chinese)

[4]
别雪, 马步仓, 赵海霞, 等. 酿酒酵母菌和乳酸菌处理玉米秸秆对滩羊瘤胃发酵参数及生产性能的影响[J]. 中国畜牧杂志, 2025, 61(3):309-316.

BIE X, MA B C, ZHAO H X, et al. Effects of Saccharomyces cerevisiae and lactobacillus treatment of corn straw on rumen fermentation parameters and production performance of Tan sheep[J]. Chinese Journal of Animal Science, 2025, 61(3):309-316. (in Chinese)

[5]
KAMAL M, LINLIN K, GAO J, et al. Effects of Saccharomyces cerevisiae and Bacillus subtilis on in vitro fermentation in the rumen of Hu sheep[J]. Journal of the Science of Food and Agriculture, 2025, 105(1):498-506.

DOI

[6]
ZHOU S D, HUANG J, ZHANG H, et al. Live yeast (Saccharomyces cerevisiae) improves growth performance and liver metabolic status of lactating Hu sheep[J]. Journal of Dairy Science, 2025, 108(4):3700-3715.

DOI

[7]
XIAO J X, ALUGONGO G M, CHUNG R, et al. Effects of Saccharomyces cerevisiae fermentation products on dairy calves:ruminal fermentation,gastrointestinal morphology,and microbial community[J]. Journal of Dairy Science, 2016, 99(7):5401-5412.

DOI

[8]
刘飞翔, 董其惠, 吴蓉, 等. 不同国家和地区传统发酵食品及其发酵微生物研究进展[J]. 食品科学, 2020, 41(21):338-350.

LIU F X, DONG Q H, WU R, et al. Recent advances in traditional fermented foods and starter cultures for their production in different countries and regions[J]. Food Science, 2020, 41(21):338-350. (in Chinese)

DOI

[9]
胡燕姣. 鸡源益生菌的筛选及其对雏鸡肠道健康的影响[D]. 硕士学位论文. 太原: 山西农业大学, 2024.

HU Y J. Screening of chicken probiotics and their effects on intestinal health of chicks[D]. Master’s Thesis. Taiyuan: Shanxi Agricultural University, 2024. (in Chinese)

[10]
蔡熙姮, 朱翔宇, 张如春, 等. 蓝狐源嗜酸乳杆菌ZJBF003株的分离鉴定及其体外益生潜能的评价[J]. 中国兽医科学, 2020, 50(8):1001-1011.

CAI X H, ZHU X Y, ZHANG R C, et al. Isolation and identification of the Lactobacillus acidophilus strain ZJBF003 from blue foxes and evaluation of its in vitro probiotic potential[J]. Chinese Veterinary Science, 2020, 50(8):1001-1011. (in Chinese)

[11]
王尧. 瘤胃源酵母菌的分离、鉴定及其对湖羊生长性能、瘤胃发酵以及微生物区系的影响[D]. 硕士学位论文. 南京: 南京农业大学, 2023.

WANG Y. Isolation and identification of ruminal yeast strain with probiotic potential and its effects on growth performance,rumen fermentation and microbiota of Hu sheep[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2023. (in Chinese)

[12]
唐柯楠. 瘤胃源酵母菌的分离筛选及其对瘤胃体外发酵的影响[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2020.

TANG K N.Isolation and screening of yeast from rumen and its effect on rumen fermentation in vitro[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2020. (in Chinese)

[13]
WANG C Y, NIU Y J, ZHANG P, et al. Effects of yeast culture (Saccharomyces cerevisiae) on growth performance,serum biochemistry,rumen fermentation and microbiota of intake-restricted multiparous Suffolk sheep[J]. Frontiers in Microbiology, 2025, 16:1601805.

DOI

[14]
CHEN X, XIAO J, ZHAO W, et al. Mechanistic insights into rumen function promotion through yeast culture (Saccharomyces cerevisiae) metabolites using in vitro and in vivo models[J]. Frontiers in Microbiology, 2024, 15:1407024.

DOI

[15]
ODUNFA O A, DHUNGANA A, HUANG Z Y, et al. Effects of a liquid and dry Saccharomyces cerevisiae fermentation product feeding program on ruminal fermentation,total tract digestibility,and plasma metabolome of Holstein steers receiving a grain-based diet[J]. Journal of Animal Science, 2024,102:skae223.

[16]
MAAMOURI O, BEN SALEM M. The effect of live yeast Saccharomyces cerevisiae as probiotic supply on growth performance,feed intake,ruminal pH and fermentation in fattening calves[J]. Veterinary Medicine and Science, 2022, 8(1):398-404.

DOI

[17]
RABEE A E, YOUNAN B R, KEWAN K Z, et al. Modulation of rumen bacterial community and feed utilization in camel and sheep using combined supplementation of live yeast and microalgae[J]. Scientific Reports, 2022, 12(1):12990.

DOI PMID

[18]
国家药典委员会. 中华人民共和国药典(2020年版)[M]. 北京: 中国医药科技出版社, 2020.

National Medical Products Administration. Pharmacopoeia of the People’s Republic of China (2020 edition)[M]. Beijing: China Medical Science Press, 2020. (in Chinese)

[19]
WANG Y, LI Z H, JIN W, et al. Isolation and characterization of ruminal yeast strain with probiotic potential and its effects on growth performance,nutrients digestibility,rumen fermentation and microbiota of Hu sheep[J]. Journal of Fungi, 2022, 8(12):1260.

DOI

[20]
石蕊, 肖莹, 林峻, 等. 鸽源益生性芽孢杆菌的分离鉴定及安全性评价[J]. 动物营养学报, 2025, 37(6):4188-4200.

DOI

SHI R, XIAO Y, LIN J, et al. Isolation,identification and safety evaluation of probiotic Bacillus derived from pigeons[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):4188-4200. (in Chinese)

DOI

[21]
刘文辉. 塔拉单宁酸抗炎抗氧化作用及微囊包被制剂的研究与应用[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2025.

LIU W H. Study on the anti-inflammatory and antioxidant effects of Tara-tannin acid and preparation and application of its microcapsules[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2025. (in Chinese)

[22]
郑景蕊. 高活性益生菌微胶囊的制备及体外模拟胃肠研究[D]. 硕士学位论文. 无锡: 江南大学, 2023.

ZHENG J R.Preparation of high activity probiotic microcapsules and its gastrointestinal simulation in vitro[D]. Master’s Thesis. Wuxi: Jiangnan University, 2023. (in Chinese)

[23]
张璐, 周英昊, 冯曼, 等. 2株羊源酵母菌的分离鉴定及体外益生特性评价[J]. 动物营养学报, 2025, 37(2):1354-1364.

DOI

ZHANG L, ZHOU Y H, FENG M, et al. Isolation and identification of two yeast strains derived from sheep and probiotic characteristics in vitro evaluation[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):1354-1364. (in Chinese)

DOI

[24]
黄姚, 么乃全, 袁伟涛, 等. 鹿源藿香假丝酵母菌DZ018的分离鉴定及其体外益生特性研究[J]. 中国畜牧兽医, 2025, 52(1):389-399.

DOI

HUANG Y, YAO N Q, YUAN W T, et al. Isolation and identification of Candida rugosa DZ018 from deer and its probiotic properties in vitro[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(1):389-399. (in Chinese)

[25]
LEE I K, JACOME D A, CHO J K, et al. Imaging sensitive and drug-resistant bacterial infection with [11C]-trimethoprim[J]. The Journal of Clinical Investigation, 2022, 132(18):e156679.

DOI

[26]
蔡育诚, 吴灌原, 杨海冬, 等. 益生菌在动物健康管理中的作用机制及其应用现状[J]. 中国畜牧兽医, 2025, 52(5):2101-2114.

DOI

CAI Y C, WU G Y, YANG H D, et al. Mechanisms and current applications of probiotics in animal health management[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(5):2101-2114. (in Chinese)

[27]
张洪伟, 谭美姝, 冯曼, 等. 益生菌调控动物肠道功能的机制及应用研究进展[J/OL]. 中国动物传染病学报, 2025:1-11(2025-07-04)[2025-09-08].https://doi.org/10.19958/j.cnki.cn31-2031/s.20250703.006.html.

ZHANG H W, TAN M S, FENG M, et al. Research progress on the mechanisms and applications of probiotic additives in regulating animal gut health[J/OL]. Chinese Journal of Veterinary Infectious Diseases, 2025:1-11(2025-07-04)[2025-09-08].https://doi.org/10.19958/j.cnki.cn31-2031/s.20250703.006.html. (in Chinese)

[28]
赵香帅. 饲用益生菌体外抑菌活性的评估及代谢物的初步鉴定与发酵优化[D]. 硕士学位论文. 昆明: 云南师范大学, 2024.

ZHAO X S. Evaluation of antibacterial activity of feed probiotics in vitro and preliminary identification of metabolites and optimization of fermentation[D]. Master’s Thesis. Kunming: Yunnan Normal University, 2024. (in Chinese)

[29]
IGBAFE J, KILONZO-NTHENGE A, NAHASHON S N, et al. Probiotics and antimicrobial effect of Lactiplantibacillus plantarum,Saccharomyces cerevisiae,and Bifidobacterium longum against common foodborne pathogens in poultry[J]. Agriculture, 2020, 10(9):368.

DOI

[30]
刘周靓, 张启航, 付雪, 等. 益生性酵母的分离鉴定与安全性评价[J]. 饲料研究, 2024, 47(16):105-111.

LIU Z L, ZHANG Q H, FU X, et al. Isolation identification and safety evaluation of probiotic yeast[J]. Feed Research, 2024, 47(16):105-111. (in Chinese)

[31]
姚志芳, 冯宇哲, 王磊, 等. 益生性酵母菌的筛选与鉴定[J]. 家畜生态学报, 2021, 42(5):38-44.

YAO Z F, FENG Y Z, WANG L, et al. Screening and identification of probiotic yeast[J]. Acta Ecologiae Animalis Domastici, 2021, 42(5):38-44. (in Chinese)

[32]
程坤, 穆帅成, 刘蕊, 等. 食品和饲料用细菌抗生素耐药性基因安全评价进展[J]. 食品与发酵工业, 2025, 51(15):357-365.

DOI

CHENG K, MU S C, LIU R, et al. Progress in safety evaluation of antibiotic resistance genes in food and feed bacteria[J]. Food and Fermentation Industries, 2025, 51(15):357-365. (in Chinese)

DOI

[33]
BADAWY M E I, RABEA E I, EID A R, et al. Structure and antimicrobial comparison between N-(benzyl) chitosan derivatives and N-(benzyl) chitosan tripolyphosphate nanoparticles against bacteria,fungi,and yeast[J]. International Journal of Biological Macromolecules, 2021, 186:724-734.

DOI

[34]
ASLAM B, WANG W, ARSHAD M I, et al. Antibiotic resistance:a rundown of a global crisis[J]. Infection and Drug Resistance, 2018, 11:1645-1658.

DOI

[35]
焦佳音. 基于代谢组学的不同来源牛至化学化学成分分析及其抗氧化活性研究[D]. 硕士学位论文. 郑州: 河南农业大学, 2025.

JIAO J Y. Metabolomics evaluation of chemical constituents and antioxidant activity in Origamum vulgare L. from different sources[D]. Master’s Thesis. Zhengzhou: Henan Agricultural University, 2025. (in Chinese)

Outlines

/