REVIEW

Research Progress on Biological Functions of Bifidobacteria and Its Application in Livestock and Poultry Production

  • TIAN Deqing ,
  • LU Na ,
  • WEN Shubo ,
  • SONG Yang , *
Expand
  • College of Animal Science and Technology, Inner Mongolia Minzu University, Tongliao 028000, China
*associate professor, E-mail:

Received date: 2026-01-13

  Online published: 2026-08-13

Abstract

Bifidobacteria, as an important probiotic, plays a significant role in maintaining gut microbiota homeostasis, enhancing intestinal barrier function and regulating host immune responses. With the transition of animal husbandry towards green, efficient and antibiotic-free farming models, bifidobacteria has garnered widespread attention in the field of animal nutrition and health due to its high safety and diverse functionalities. bifidobacteria contributes to the maintenance of intestinal microecological homeostasis and immune balance by modulating gut microbial composition, strengthening intestinal barrier integrity and balancing immune responses. This review systematically summarizes the key biological functions and mechanisms of bifidobacteria, as well as its research progress in applications across various livestock and poultry production systems. Furthermore, it explores the potential and future directions for the rational development and precise application of bifidobacteria in animal nutrition regulation, aiming to provide a theoretical basis for its targeted utilization.

Cite this article

TIAN Deqing , LU Na , WEN Shubo , SONG Yang . Research Progress on Biological Functions of Bifidobacteria and Its Application in Livestock and Poultry Production[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 5684 -5695 . DOI: 10.12418/CJAN2026.456

双歧杆菌(bifidobacteria)是双歧杆菌属(Bifidobacterium)细菌的统称,作为放线菌门(Actinobacteria)中的革兰氏阳性厌氧菌,是动物肠道中重要的共生微生物。自Tissier于1899年首次从母乳喂养婴儿粪便中分离出该菌以来,其典型的分叉形态和广泛的益生功能逐渐被揭示[1-2]。在母乳喂养的婴儿肠道中,双歧杆菌是早期定植的优势菌群,占肠道细菌总数的60%以上,其优势地位与对母乳低聚糖的高效利用能力密切相关[3]。然而,幼龄动物肠道早期定植的菌群以兼性厌氧菌为主,如大肠杆菌(Escherichia coli)和链球菌属(Streptococcus),随着日龄增长,肠道菌群结构逐步向以严格厌氧菌占优的状态演替。在此菌群演替过程中,双歧杆菌、乳杆菌属(Lactobacillus)等厌氧菌逐步增殖,但在早期肠道菌群中双歧杆菌所占比例通常较低(<10%)[4-5]。研究证实,通过外源性补充特定的双歧杆菌菌株,可以有效提高其在幼畜肠道中的丰度,从而发挥促进健康、改善生产性能的益生作用[6]
当前畜牧业面临的核心挑战是在无抗养殖背景下维持动物健康并提升生产效率。双歧杆菌所具备的独特定植能力和多样的益生功能,展现出广阔的应用前景。大量研究表明,双歧杆菌具有调节菌群平衡、增强肠道屏障、免疫调节、降胆固醇等多重功能[7-10]。在畜牧生产中,双歧杆菌可通过提高营养物质消化率、优化肠道微生物区系等途径,有效提升畜禽生产性能[11-13]。然而,与乳杆菌属等其他益生菌相比,双歧杆菌在畜牧领域的研究和应用仍相对有限,存在菌株功能特异性不明确、作用机制不清晰等问题。因此,本文系统综述了双歧杆菌的分类、生理生化特性、主要益生作用机制以及其在畜禽生产中的应用研究,旨在为相关研究和实际生产提供有益的参考。

1 双歧杆菌的分类

根据《伯杰氏系统细菌学手册》(2012年第2版)[14]的分类标准,双歧杆菌隶属于放线菌门,目前已鉴定的种约32个(表1)。目前,研究较为深入且在畜禽生产中展现出良好应用潜力的核心菌种,主要包括长双歧杆菌(B. longum)、动物双歧杆菌(B. animalis)、两歧双歧杆菌(B. bifidum)和短双歧杆菌(B. breve)等。在亚种水平上,部分双歧杆菌种内可进一步划分为不同亚种。动物双歧杆菌可进一步划分为动物亚种和乳亚种;假长双歧杆菌可进一步划分为假长亚种和球形亚种;嗜热嗜酸双歧杆菌可进一步划分为嗜酸热亚种和猪亚种。长双歧杆菌的亚种分类较为复杂,目前已确定包括长亚种、婴儿亚种和猪亚种3个亚种。
表1 双歧杆菌的来源和分类

Table 1 Origin and classification of bifidobacteria[14]

项目 Items 来源 Source
青春双歧杆菌 Bifidobacterium adolescentis 成人粪便、牛瘤胃、污水
动物双歧杆菌 Bifidobacterium animalis
动物双歧杆菌动物亚种 Bifidobacterium animalis subsp. animalis 豚鼠和大鼠粪便
动物双歧杆菌乳亚种 Bifidobacterium animalis subsp. lactis 犊牛、鸡、兔粪便,污水,发酵乳(酸奶)
短双歧杆菌 Bifidobacterium breve 婴儿和哺乳犊牛粪便、人类阴道、污水
链状双歧杆菌 Bifidobacterium catenulatum 婴儿和成人粪便、人类阴道、污水
长双歧杆菌 Bifidobacterium longum
长双歧杆菌长亚种 Bifidobacterium longum subsp. longum 成人、婴儿、哺乳犊牛粪便,人类阴道、污水
长双歧杆菌婴儿亚种 Bifidobacterium longum subsp. infantis 婴儿和哺乳犊牛粪便,人类阴道
长双歧杆菌猪亚种 Bifidobacterium longum subsp. suis 仔猪粪便
嗜热嗜酸双歧杆菌 Bifidobacterium thermacidophilum
嗜热嗜酸双歧杆菌嗜酸热亚种
Bifidobacterium thermacidophilum subsp. thermacidophilum
废水
嗜热嗜酸双歧杆菌猪亚种
Bifidobacterium thermacidophilum subsp. porcinum
仔猪粪便
嗜热双歧杆菌 Bifidobacterium thermophilum 鸡、猪和哺乳犊牛粪便,牛瘤胃,污水
角双歧杆菌 Bifidobacterium angulatum 污水、成人粪便
纤细双歧杆菌 Bifidobacterium subtile 污水
斯卡多夫伊双歧杆菌 Bifidobacterium scardovii 人类血液
星状双歧杆菌 Bifidobacterium asteroides 高加索蜜蜂、意大利蜜蜂和欧洲黑蜂亚种肠道
世纪双歧杆菌 Bifidobacterium saeculare 兔子粪便
两歧双歧杆菌 Bifidobacterium bifidum 成人、婴儿及哺乳犊牛粪便,人类阴道
瘤胃双歧杆菌 Bifidobacterium ruminantium 牛瘤胃
熊蜂双歧杆菌 Bifidobacterium bombi 不同熊蜂的消化道
雏鸡双歧杆菌 Bifidobacterium pullorum 鸡粪便
牛双歧杆菌 Bifidobacterium boum 牛瘤胃、仔猪粪便
嗜冷双歧杆菌 Bifidobacterium psychraerophilum 猪盲肠(内容物和上皮组织)
假长双歧杆菌 Bifidobacterium pseudolongum
假长双歧杆菌假长亚种
Bifidobacterium pseudolongum subsp. pseudolongum
公牛、犊牛、鸡、狗、豚鼠、猪和大鼠粪便
假长双歧杆菌球形亚种
Bifidobacterium pseudolongum subsp. globosum
牛瘤胃,羔羊、仔猪、兔子、大鼠和哺乳犊牛粪便,污水
猪双歧杆菌 Bifidobacterium choerinum 仔猪粪便、污水
假链双歧杆菌 Bifidobacterium pseudocatenulatum 婴儿和哺乳犊牛粪便、污水
棒状双歧杆菌 Bifidobacterium coryneforme 欧洲蜜蜂亚种肠道
最小双歧杆菌 Bifidobacterium minimum 污水、猪盲肠
兔双歧杆菌 Bifidobacterium cuniculi 兔子粪便
反刍双歧杆菌 Bifidobacterium merycicum 牛瘤胃
齿双歧杆菌 Bifidobacterium dentium 人类龋齿和口腔、成人粪便、人类阴道、人类脓肿和阑尾
巨大双歧杆菌 Bifidobacterium magnum 兔子粪便
高卢双歧杆菌 Bifidobacterium gallicum 人类粪便
印度双歧杆菌 Bifidobacterium indicum 中华蜜蜂和印度蜜蜂肠道
鸡双歧杆菌 Bifidobacterium gallinarum 鸡盲肠
蒙古双歧杆菌 Bifidobacterium mongoliense 发酵乳(马奶酒)
鹤见双歧杆菌 Bifidobacterium tsurumiense 仓鼠牙菌斑

2 双歧杆菌的生理生化特性

2.1 生理特性与代谢功能特征

双歧杆菌为革兰氏阳性、过氧化氢酶阴性、专性厌氧杆菌,不形成芽孢、无运动性,最适生长温度为37~41 ℃,最适pH为6.5~7.0,基因组G+C含量介于59.2%~64.6%,基因组大小为1.73~3.16 Mb,上述生理指标会因菌株来源和宿主环境的差异而有所波动[15-17]。双歧杆菌重要的代谢特征是具有果糖-6-磷酸磷酸酮醇酶(fructose-6-phosphate phosphoketolase,F6PPK)介导的“双歧途径”,使其能高效利用母乳低聚糖、乳糖等多种复杂碳水化合物,发酵终产物以乙酸和乳酸为主,该代谢特性既有助于维持肠道微酸环境,也有助于提升底物能量利用效率[18]。此外,双歧杆菌的双歧因子包括低聚果糖、异麦芽低聚糖等功能性低聚糖,这些底物可以被双歧杆菌选择性利用[19]

2.2 耐酸机制

双歧杆菌的耐酸特性是其经受胃酸环境并在肠道定植的关键前提,该特性主要依赖于细胞内的pH稳态调控和细胞膜的结构适应性重塑。在分子机制上,F1F0-ATP酶发挥重要作用,该酶作为一种质子泵,在正常生理条件下可利用质子回流驱动ATP合成;而在酸性胁迫下,则通过水解ATP将胞内过多的氢离子(H+)主动外排,从而维持胞内中性环境[20-21]。研究表明,酸应激可诱导F1F0-ATP酶表达和活性上调。在pH 4.8条件下,长双歧杆菌NCIMB 8809及其耐酸突变株的F1F0-ATP酶亚基表达均显著上调,且突变株上调幅度更为显著[22];此外,酸预处理同样可提升酶活性,长双歧杆菌BBMN68经pH 4.5预应激后,在致死性pH 3.5条件下仍能保持较高的酶活性及相关γ亚基表达水平[23]。然而,这种应激响应存在显著的菌株差异性,例如,齿双歧杆菌Bd1在pH 4.0时并未出现F1F0-ATP酶转录上调[24],而短双歧杆菌BB8的耐酸突变株甚至表现出更低的酶活性[25],表明不同菌株可能存在差异化的耐酸策略。除质子泵系统外,细胞膜脂组成的适应性变化是另一重要耐酸机制。在酸胁迫下,双歧杆菌能够调整膜脂肪酸的构成,以降低膜流动性和质子渗透性,增强膜稳定性。例如,长双歧杆菌JDM301的耐酸突变株在pH 3.5条件下,其细胞膜中十四烷酸(C14∶0)比例升高,且脂肪酸代谢相关基因表达上调[26]。并且,经吐温80强化筛选下获得的耐酸衍生株长双歧杆菌JDY1017dpH和短双歧杆菌BB8dpH菌膜内油酸(C18∶1)和环丙烷脂肪酸(cycC19∶0)含量增加,饱和脂肪酸与不饱和脂肪酸比值(SFA/UFA)下降,平均脂肪酸链长度延长,这些改变共同提升了细胞膜在酸胁迫下的稳定性[27]

2.3 胆汁耐受机制

双歧杆菌对胆汁的耐受能力是其通过小肠上段高胆汁酸环境并成功定植的关键。该机制主要包括胆盐水解酶(bile salt hydrolase,BSH)介导的胆盐解毒作用、细胞膜脂组成的适应性重塑以及细胞内应激响应的协调启动。其中,BSH能够催化结合型胆盐(如牛磺胆酸、甘氨胆酸等)水解为游离胆酸,结合型胆盐对双歧杆菌有抑制作用,而BSH介导的水解可缓解该抑制,这是双歧杆菌抵御胆汁损伤的关键机制之一[28-29]。BSH在双歧杆菌中分布广泛,且部分菌株的BSH具有良好的环境稳定性,如长双歧杆菌SBT2928的BSH为四聚体结构,能有效水解多种胆盐并在胃肠环境中保持较高活性[30]。在细胞膜层面,双歧杆菌通过调整膜脂组成以增强对胆汁的抵抗能力。胆汁胁迫可诱导细胞膜脂肪酸组成和饱和度的调整,进而提高膜疏水性、降低膜流动性并减少胆盐跨膜渗透,维护膜结构的完整性[31]。研究显示,短双歧杆菌UCC2003在0.5%猪胆汁中暴露20 min后,脂肪酸合成相关基因和寡肽转运基因显著上调[32];长双歧杆菌BBMN68在0.75 g/L牛胆汁胁迫下,环化脂肪酸合酶基因和溶血素样蛋白编码基因显著上调,同时多糖腺苷三磷酸结合盒转运蛋白(ABC转运蛋白)等跨膜转运基因普遍下调,表明其通过重塑膜脂和表面组分来增强对胆汁的抵抗[33]。此外,当胆汁对细胞蛋白质和膜结构造成损伤时,双歧杆菌还会激活蛋白质稳态相关的应激响应网络,包括分子伴侣和双组分系统调节蛋白的上调,促进错误折叠蛋白的修复与再折叠,维持细胞的代谢活动与生理功能[34]

3 双歧杆菌的生物学功能

3.1 维护肠道健康

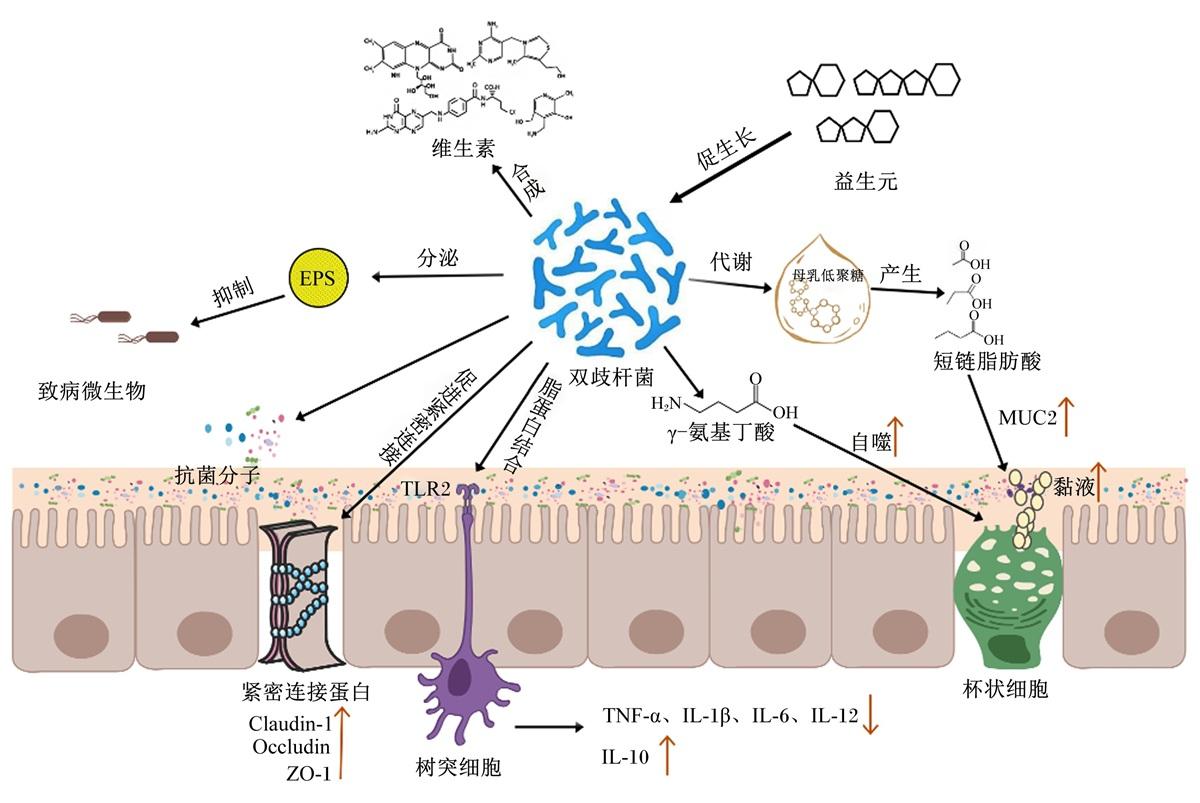
双歧杆菌维护宿主肠道健康的作用主要通过调控菌群平衡和增强肠道屏障功能2种途径实现。双歧杆菌可通过竞争性抑制病原菌黏附和定植,分泌抗菌物质以及与益生元协同作用等机制,优化肠道微生态结构[35]。Uraipan等[36]研究表明,源自健康婴儿粪便的双歧杆菌对大肠杆菌、金黄色葡萄球菌(Staphylococcus aureus)和沙门氏菌等常见病原菌具有明显的竞争性抑制作用。Toscano等[37]进一步发现,摄入含长双歧杆菌BB536的复合益生菌制剂可显著降低受试者肠道丝状霍尔德曼氏菌(Holdemania filiformis)、脆弱拟杆菌(Bacteroides fragilis)等有害菌的丰度,增加布劳特氏菌属(Blautia)、杜克雷嗜血杆菌(Haemophilus ducreyi)等菌的丰度。此外,双歧杆菌在代谢过程中产生的乙酸、丙酸等短链脂肪酸可通过降低肠道内pH抑制致病菌生长,其分泌的细菌素等抗菌分子可通过破坏靶细胞膜完整性或在细胞代谢过程发挥抑菌作用,并且双歧杆菌与益生元之间存在协同效应,可进一步增强其对肠道菌群稳态的调控作用[38-40]。除调控菌群结构外,双歧杆菌还可通过上调肠道上皮细胞紧密连接蛋白相关基因的表达,增强细胞间连接完整性,从而改善屏障功能[41]。研究表明,两歧双歧杆菌可显著上调黏蛋白2(MUC2)以及闭锁小带蛋白-1(ZO-1)、闭合蛋白(Occludin)、封闭蛋白-1(Claudin-1)等紧密连接蛋白的mRNA表达,促进黏液层形成,增强上皮屏障完整性[42-43]。部分菌株如齿双歧杆菌的代谢产物γ-氨基丁酸可诱导杯状细胞自噬,其产生的乙酸能显著促进MUC2的表达与分泌,从而加强黏液层屏障[44]

3.2 增强免疫功能

双歧杆菌主要通过直接与肠道黏膜免疫系统互作及分泌生物活性代谢产物2种途径调节宿主免疫功能,在维持免疫平衡、减轻肠道炎症方面发挥重要作用。在直接免疫调节方面,双歧杆菌可通过与免疫细胞表面模式识别受体结合,调控细胞因子表达,从而平衡促炎与抗炎反应[45]。Zeuthen等[46]体外研究表明,双歧杆菌表面的脂蛋白可作为配体与树突状细胞(DC)表面的Toll样受体2(TLR2)结合,抑制DC产生白细胞介素-12(IL-12)和肿瘤坏死因子-α(TNF-α)等促炎因子,同时促进抗炎因子白细胞介素-10(IL-10)的分泌,从而调控免疫反应的平衡。Li等[47]在葡聚糖硫酸钠(DSS)诱导的小鼠结肠炎模型中发现,灌服短双歧杆菌21 d可显著提升结肠组织IL-10的mRNA和蛋白表达,并降低TNF-α、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)等促炎因子水平,有效缓解肠道炎症和上皮损伤。在代谢产物介导的免疫调节中,胞外多糖和短链脂肪酸等分子具有重要功能。双歧杆菌产生的胞外多糖不仅可直接发挥免疫调控作用,还能通过影响肠道菌群间接调节免疫应答[48]。其中,短双歧杆菌UCC2003产生的胞外多糖可增强菌株在小鼠肠道内的定植持久性,并通过抑制致病菌定植降低感染风险[49]。此外,双歧杆菌代谢产生的乙酸可激活肠上皮细胞中的类视黄醇X受体(RXR)信号通路,诱导抗炎基因表达[50]。婴儿双歧杆菌则可利用母乳低聚糖生成吲哚-3-乳酸(ILA),该代谢物通过激活芳香烃受体(AhR)/核因子E2相关因子2(Nrf2)信号通路抑制肠上皮细胞炎性细胞因子释放,从而缓解肠道炎症[51]

3.3 改善营养代谢

双歧杆菌通过维生素生物合成、复杂碳水化合物的分解利用以及脂质代谢调控等方面改善宿主营养代谢。双歧杆菌能够合成多种B族维生素,包括硫胺素(维生素B1)、烟酸(维生素B3)、吡哆醇(维生素B6)和叶酸(维生素B9)等,这些维生素作为关键辅酶或辅基,参与机体多种代谢过程,是维持宿主正常生理功能所必需的[52]。此外,双歧杆菌还可通过分泌多种水解酶,协助分解宿主难以直接利用的复杂碳水化合物。De Bruyn等[53]通过体外结肠发酵模型发现,长双歧杆菌婴儿亚种LMG 11588能有效代谢母乳低聚糖,促进短链脂肪酸的生成,为肠上皮细胞和共生菌群提供能量底物,优化肠道代谢环境。近年来的研究还表明,双歧杆菌在调节脂质代谢、改善肥胖相关代谢紊乱方面具有潜在应用价值。研究显示,长双歧杆菌MG723和两歧双歧杆菌MG731可以通过激活胆汁酸-法尼醇X受体(BA-FXR)介导的代谢信号通路,调节脂肪组织能量代谢,并影响肝脏脂质合成和肠道胆固醇代谢,从而缓解高脂饮食诱导的肥胖、脂肪肝和糖代谢异常[54]。部分菌株如动物双歧杆菌乳亚种A6代谢产生的乙酸可激活脂肪细胞中的G蛋白偶联受体43-过氧化物酶体增殖物激活受体α(GPR43-PPARα)信号通路,促进脂肪酸β氧化,有效改善肥胖相关代谢紊乱[55]
综上所述,双歧杆菌通过多途径协同对宿主健康发挥系统性作用,主要包括竞争性抑制致病菌定植、分泌抗菌物质以及与益生元协同等方式优化肠道菌群稳态;上调紧密连接蛋白表达、促进黏蛋白分泌强化肠道屏障功能;通过表面组分与免疫细胞受体结合、代谢产物介导信号通路的方式平衡免疫应答,并参与B族维生素合成、复杂碳水化合物利用以改善宿主营养代谢。双歧杆菌影响宿主健康的作用机制见图1
图1 双歧杆菌影响宿主健康的作用机制

IL-12:白细胞介素-12 interleukin-12;IL-10:白细胞介素-10 interleukin-10;IL-1β:白细胞介素-1β interleukin-1β;IL-6:白细胞介素-6 interleukin-6;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;TLR2:Toll样受体2 Toll-like receptor-2;ZO-1:闭锁小带蛋白-1 zonula occludens-1;Occludin:闭合蛋白;Claudin-1:封闭蛋白-1;MUC2:黏蛋白2 mucin 2;EPS:胞外多糖 exopolysaccharide。

Fig.1 Mechanisms of bifidobacteria affecting host health

4 双歧杆菌在畜禽生产中的应用

双歧杆菌作为益生菌在畜禽生产中具有重要应用价值,既可以单独添加,也可以与乳杆菌属、屎肠球菌(Enterococcus faecalis)等菌株联合使用,其在调节肠道微生态平衡、降低腹泻率、增强机体免疫功能及辅助疾病防控方面表现出良好潜力。

4.1 在家禽生产中的应用

双歧杆菌可通过调节肠道微生物结构、增强肠道屏障完整性、改善营养物质消化吸收以及调控免疫反应等多重途径,对家禽的生长性能和健康状况产生积极影响。然而,其作用效果在不同家禽类型、生长阶段以及应用方式下表现出一定差异。在蛋鸡生产中,双歧杆菌可以有效改善蛋鸡的蛋品质。Yan等[56]研究发现,在60周龄白来航蛋鸡饲粮中连续添加含动物源双歧杆菌的复合益生菌49 d,可显著降低不合格蛋比率,并提高胫骨和股骨的矿物质密度和含量,同时所有益生菌添加组盲肠中双歧杆菌数量显著增加,表明双歧杆菌有益作用的潜在机制与调控肠道微生物组成相关。另有研究报道,在30周龄蛋鸡饲粮中添加0.5%双歧杆菌和0.25%干酪乳杆菌的复合益生菌制剂28 d,可在降低料蛋比的同时,提高蛋重和日产蛋量,并能提高经济效益[13]。然而,现有研究多集中于复合益生菌制剂,且试验周期普遍较短,缺乏对整个产蛋周期应用效果的系统评估。
在肉鸡生产中,双歧杆菌通过调节肠道菌群、平衡免疫应答并改善肠道生理功能,协同提高肉鸡的生长性能。Abdel-Moneim等[57]研究发现,给17日龄鸡胚注射双歧杆菌可显著改善肉鸡出栏体重、机体免疫球蛋白水平及肠道绒毛形态指标,同时增加回肠乳酸菌和双歧杆菌数量,抑制大肠杆菌增殖,表明胚胎期干预对早期肠道菌群定植和免疫器官发育具有重要影响。Mohammed等[58]指出,在热应激条件下,给1日龄雏鸡饲喂含双歧杆菌(1×10⁶ CFU/g)的合生元制剂42 d,可有效抑制盲肠病原菌增殖,增强机体抗氧化能力并调节免疫反应,缓解热应激对肉鸡健康造成的不利影响;该结果说明双歧杆菌在非理想饲养环境中具有一定的缓冲和保护作用。研究显示,两歧双歧杆菌和甘露寡糖联合使用还可改善肉鸡体重增益和饲料转化率[59]。此外,在沙门氏菌感染模型中,补充特定双歧杆菌可增强肉鸡肠道屏障功能并调节免疫平衡,从而缓解感染引起的损伤。Chen等[60]报道,连续饲喂两歧双歧杆菌后生元14 d,可显著改善鸡白痢沙门氏菌感染雏鸡的生长性能,并通过上调紧密连接蛋白ZO-1、OccludinClaudin-1的mRNA表达,修复受损的肠道屏障,调节盲肠菌群结构,减轻炎症反应。Yang等[61]研究发现,雏鸡在感染白痢沙门氏菌前后,饲喂乳双歧杆菌JYBR-190(1.0×10⁹ CFU/mL)14 d均可显著改善肠道黏膜结构,上调IL-10水平,并下调TNF-α和干扰素-γ(IFN-γ)等促炎因子的表达,从而有效减轻肠道炎症反应,表明特定双歧杆菌在病原挑战下调节免疫稳态的能力。
在鹅、鸭等水禽生产中,补充双歧杆菌可有效改善生长性能、免疫及抗氧化功能,并提高肉品质和饲料转化率。陈实等[62]报道,在1日龄雏鹅饲粮中添加300 mg/kg双歧杆菌,连续饲喂28 d可有效缓解脂多糖(LPS)诱导的应激反应,改善其生长性能、免疫和抗氧化功能,并促进肝脏和肠道组织损伤的修复。Khabirov等[63]研究发现,在1日龄北京鸭饲粮中添加含嗜酸乳杆菌和青春双歧杆菌的复合益生菌42 d,可显著提高其活体重、平均日增重、血红蛋白含量、营养物质消化率和肉品质。Lokapirnasari等[64]进一步指出,联合使用多菌株益生菌(含嗜酸乳杆菌、干酪乳杆菌、乳酸乳球菌和双歧杆菌)和辣木提取物,可在一定程度上协同提高北京鸭的饲料转化率和屠宰率。现有研究多集中于验证有效性的现象层面,未来需加强机制探索以实现精准应用。

4.2 在猪生产中的应用

双歧杆菌可通过抑制病原定植、改善肠道形态和增强黏膜屏障功能,对仔猪肠道健康产生积极调控作用。Barba-Vidal等[65]研究表明,对于28日龄感染鼠伤寒沙门氏菌的仔猪,连续16 d口服含长双歧杆菌婴儿亚种CECT 7210和乳双歧杆菌BPL6的复合发酵液(1×10⁹ CFU/d),可显著降低粪便病原菌排泄量,缓解直肠温度升高,并改善肠道绒毛高度与隐窝深度比值。进一步研究显示,在同样的感染背景下,单独使用相同剂量的长双歧杆菌婴儿亚种CECT 7210悬液干预14 d,也能降低断奶仔猪粪便沙门氏菌含量和回肠大肠杆菌K88定植率,并改善肠道形态[66]。相比复合制剂,单菌株在相应病原体感染下也能发挥屏障保护作用,提示双歧杆菌的作用可能受菌株自身特性的影响。Daniels等[67]则在2日龄仔猪代乳品中添加2'-岩藻糖基乳糖(2'-FL)和长双歧杆菌婴儿亚种Bi-26,结果表明促进了该菌在仔猪结肠和直肠定植,并降低了回肠隐窝深度,表明双歧杆菌作为配方乳添加成分具有潜在应用价值。
双歧杆菌还可通过重塑肠道菌群结构、调节代谢和氧化应激状态,进而促进仔猪肠道稳态的建立和维持。He等[68]在21日龄断奶仔猪饲粮中添加乳杆菌属和嗜热双歧杆菌(1×10⁹ CFU/g,各2 g/kg)饲喂28 d,发现盲肠菌群α多样性显著提高,拟杆菌科(Bacteroidaceae)和梭菌目(Clostridium)等潜在有益菌丰度增加,而普雷沃氏菌属(Prevotella)丰度下降;同时,盲肠内甘油三酯(TG)和磷脂酰丝氨酸(PS)等脂质代谢物水平显著升高,表明双歧杆菌可能通过代谢调控参与菌群稳态重建。Pang等[6]进一步报道,在21日龄断奶仔猪饲粮中添加动物双歧杆菌乳亚种JYBR-190(1×10¹⁰ CFU/kg)饲喂28 d,可显著降低腹泻率,提高空肠黏膜总抗氧化能力,并增加链球菌属(Streptococcus)、丹毒丝菌科_UCG-003(Erysipelotrichaceae_UCG-003)、粪球菌属(Coprococcus)、颤杆菌属(Oscillibacter)等有益菌丰度,同时降低螺杆菌属(Helicobacter)和埃希氏菌-志贺氏菌属(Escherichia-Shigella)等有害菌丰度;该结果进一步支持双歧杆菌通过调节菌群结构和氧化应激状态,共同参与维持断奶期肠道稳态。此外,双歧杆菌在仔猪中的应用效果受到给药时间和剂量的影响。李琛等[11]分别在哺乳仔猪1和3日龄时灌服双歧杆菌复合益生菌制剂(2.40×10¹⁰ CFU/mL,1~3 mL),试验组仔猪平均日增重提高,血清中免疫球蛋白M(IgM)、免疫球蛋白G(IgG)、免疫球蛋白A(IgA)水平显著增加,对缓解仔猪早期断奶应激具有良好作用;其中,3 mL灌服剂量效果最好,提示早期干预可能有助于后续生长性能的改善。
此外,在仔猪和母猪饲粮中补充含双歧杆菌的益生菌或合生元,可通过调节体液免疫与炎症因子平衡,增强机体免疫功能,并维持生理阶段的免疫稳态。郭东清等[69]研究显示,在21日龄断奶仔猪饲粮中添加含双歧杆菌的合生元28 d后,仔猪血清中IgM、IgG、IgA水平显著升高,表明体液免疫功能得到增强;该研究中低剂量组(5、10 g/kg)的改善效果优于高剂量组(20 g/kg),提示药物添加存在适宜剂量范围,过高剂量可能不利于效果提升。此外,黄卫强[70]在母猪上的研究指出,从妊娠100 d至分娩后23 d,在饮水中添加含乳双歧杆菌Probio-M8和鼠李糖乳杆菌Probio-M9的复合益生菌(40 g/t),可显著下调妊娠后期促炎因子IL-1βIL-12和TNF-α的表达,并上调哺乳期抗炎因子白细胞介素-4(IL-4)、IL-10和干扰素-α(IFN-α)水平,表明双歧杆菌对母猪围产期免疫平衡具有积极的阶段性调控作用。综上所述,双歧杆菌通过抑制病原菌定植、改善肠道结构、调节菌群与免疫应答,在仔猪以及母猪健康维持、免疫稳态建立中发挥重要作用,但其长期效应及应用稳定性仍需进一步验证。

4.3 在反刍动物生产中的应用

在反刍动物生产中,双歧杆菌通过调节宿主早期肠道微生态、提升营养代谢和氮利用效率,从而促进生长性能。Zábranský等[12]研究发现,在新生犊牛的初乳或代乳粉中单独添加两歧双歧杆菌(4.1×10⁷ CFU/g)或者添加含两歧双歧杆菌、屎肠球菌、产芽孢乳杆菌的混合益生菌并持续21 d,均可显著提高犊牛体重。这表明在瘤胃尚未完全发育、肠道微生态处于高度可塑阶段的早期,双歧杆菌可能通过调节肠道环境发挥促生长作用。吴占月等[71]进一步在6月龄欧拉羊中开展研究,发现低剂量(5×10⁶ CFU/g)和高剂量(5×107 CFU/g)双歧杆菌干预30 d均可提高生长性能和平均日增重,但低剂量组效果反而更优,且伴随营养代谢效率提升和肠道菌群多样性增加,提示双歧杆菌并非添加剂量越高效果越好,在实际应用中需结合效益和成本,对添加剂量进行精准优化。类似的结论在曹志坤[72]的研究中也得到支持,该研究在110日龄湖羊饲粮中添加双歧杆菌(1.5×10⁸ CFU/d)饲喂56 d后,提高了平均日增重和抗氧化能力,同时降低了瘤胃氨态氮浓度,表明双歧杆菌可能通过提升氮利用效率来改善生产性能。
此外,双歧杆菌可参与反刍动物脂肪酸代谢调控,促进共轭亚油酸(CLA)生成并优化脂肪酸组成。Park等[73]在体外瘤胃模拟体系中发现,短双歧杆菌LMC52可将约15%的亚油酸(LA)转化为共轭亚油酸(CLA),且其生物氢化活性较低,表明该菌在CLA富集方面具有益生潜力。Santillo等[74]通过体内试验表明,在1日龄羔羊代乳粉中添加1×10⁷ CFU/mL嗜酸乳杆菌或动物双歧杆菌乳亚种与长双歧杆菌长亚种(1∶1)的混合菌,饲喂42 d可显著提高羊肉中CLA含量并降低饱和脂肪酸的比例;该结果表明,多菌株协同可能更有利于脂肪酸代谢调控。在反刍动物早期生长阶段补充双歧杆菌或其复合益生菌制剂,可降低腹泻发生率,从而促进生长发育和健康。马梦真等[75]研究表明,给1周龄羔羊灌服3×10⁹ CFU/g的双歧杆菌28 d,可显著降低由大肠杆菌引起的腹泻发生率,说明其在早期肠道屏障建立中具有保护功能。Guo等[76]在2日龄荷斯坦犊牛中进行的30 d试验进一步表明,添加含动物双歧杆菌的复合益生菌可提高犊牛平均日增重并降低腹泻率,其中6 g添加量效果最佳,说明复合益生菌制剂在调节生长和健康方面具有潜力。此外,饲喂含动物双歧杆菌AMT30的复合益生菌制剂30 d,可显著增强羔羊细胞吞噬活性和细胞内杀伤活性,表明双歧杆菌可以调节羔羊的先天免疫状态,增强机体抗感染潜力[77]。总体来看,双歧杆菌在反刍动物生产中通过调控肠道微生态、提升营养利用效率、参与脂肪酸代谢调节、降低腹泻发生风险等多途径发挥综合效益,但其菌株功能的特异性以及最佳效应剂量仍需进一步研究。

5 小结

双歧杆菌通过调节肠道菌群稳态、增强肠道物理和免疫屏障、平衡宿主免疫反应以及优化营养代谢等多重机制,在促进畜禽健康、改善生长性能和产品品质方面展现出明确的应用潜力,是推动畜牧业向“无抗”养殖和绿色可持续发展转型的重要工具之一。然而,其规模化应用仍面临一系列挑战,包括菌株功能特异性差异、深层作用机制尚未完全阐明,以及产业化过程中活菌稳定性等技术瓶颈。未来研究应着重加强分子机制解析,推动精准菌株选育和应用方案优化,以实现双歧杆菌在畜禽生产中的精准、高效和规模化应用。尽管仍有关键技术有待突破,但双歧杆菌在促进动物健康、提升生产效益和保障食品安全方面的核心价值已获广泛认可,具有科学研究价值和产业应用前景。
[1]
SCHÖPPING M, ZEIDAN A A, FRANZÉN C J. Stress response in bifidobacteria[J]. Microbiology and Molecular Biology Reviews, 2022, 86(4):e0017021.

[2]
PYCLIK M, SRUTKOVA D, SCHWARZER M, et al. peptidoglycans, Bifidobacteria cell wall-derived exo-polysaccharides,lipoteichoic acids, polar lipids and proteins-their chemical structure and biological attributes[J]. International Journal of Biological Macromolecules, 2020, 147:333-349.

[3]
LAURSEN M F, ROAGER H M. Human milk oligosaccharides modify the strength of priority effects in the Bifidobacterium community assembly during infancy[J]. The ISME Journal, 2023, 17(12):2452-2457.

[4]
GRYAZNOVA M V, DVORETSKAYA Y D, SYROMYATNIKOV M Y, et al. Changes in the microbiome profile in different parts of the intestine in piglets with diarrhea[J]. Animals, 2022, 12(3):320.

[5]
MALMUTHUGE N, LIANG G X, GRIEBEL P J, et al. Taxonomic and functional compositions of the small intestinal microbiome in neonatal calves provide a framework for understanding early life gut health[J]. Applied and Environmental Microbiology, 2019, 85(6):e02534-18.

[6]
PANG J M, LIU Y S, KANG L Y, et al. Bifidobacterium animalis promotes the growth of weaning piglets by improving intestinal development,enhancing antioxidant capacity,and modulating gut microbiota[J]. Applied and Environmental Microbiology, 2022, 88(22):e0129622.

[7]
SUN S, LUO L J, LIANG W H, et al. Bifidobacterium alters the gut microbiota and modulates the functional metabolism of T regulatory cells in the context of immune checkpoint blockade[J]. Proceedings of the National Academy of Sciences, 2020, 117(44):27509-27515.

[8]
LI X Y, SHANG J, WANG X J, et al. Bifidobacterium longum JBLC-141 alleviates hypobaric hypoxia-induced intestinal barrier damage by attenuating inflammatory responses and oxidative stress[J]. Frontiers in Microbiology, 2024, 15:1501999.

[9]
FANG H T, LI H Z, CHEN Y, et al. Bifidobacterium breve CCFM1310 enhances immunity in immunosuppressed mice via modulating immune response and gut microbiota[J]. Food Bioscience, 2024, 59:104058.

[10]
JIANG J C, WU C E, ZHANG C C, et al. Strain-specific effects of Bifidobacterium longum on hypercholesterolemic rats and potential mechanisms[J]. International Journal of Molecular Sciences, 2021, 22(3):1305.

[11]
李琛, 郭浩, 郝壮, 等. 双歧杆菌复合益生菌制剂对哺乳仔猪生长性能及腹泻治疗效果的影响[J]. 饲料研究, 2022, 45(7):27-31.

LI C, GUO H, HAO Z, et al. Effect of bifidobacteria compound probiotic on growth performance and diarrhea treatment of suckling piglets[J]. Feed Research, 2022, 45(7):27-31. (in Chinese)

[12]
ZÁBRANSKÝ L, POBORSKÁ A, GÁLIK B, et al. Influence of probiotic strains Bifidobacterium,Lactobacillus,and Enterococcus on the health status and weight gain of calves,and the utilization of nitrogenous compounds[J]. Antibiotics, 2022, 11(9):1273.

[13]
LOKAPIRNASARI W P, PRIBADI T B, ARIF A A, et al. Potency of probiotics Bifidobacterium spp. and Lactobacillus casei to improve growth performance and business analysis in organic laying hens[J]. Veterinary World, 2019, 12(6):860-867.

[14]
BIAVATI B, MATTARELLI P. Genus . Bifidobacterium[M]//GOODFELLOW M,KAMPFER P,BUSSE H J,et al. Bergey’s manual of systematic bacteriology. 2nd ed. New York: Springer,2012:171-206.

[15]
CHEN J, CHEN X Y, HO C L. Recent development of probiotic Bifidobacteria for treating human diseases[J]. Frontiers in Bioengineering and Biotechnology, 2021, 9:770248.

[16]
O’CALLAGHAN A, VAN SINDEREN D. Bifidobacteria and their role as members of the human gut microbiota[J]. Frontiers in Microbiology, 2016, 7:925.

[17]
SHAH N P. Functional cultures and health benefits[J]. International Dairy Journal, 2007, 17(11):1262-1277.

[18]
POKUSAEVA K, FITZGERALD G F, VAN SINDEREN D. Carbohydrate metabolism in Bifidobacteria[J]. Genes & Nutrition, 2011, 6(3):285-306.

[19]
雷燕, 曹霞飞, 黄志深, 等. 双歧杆菌生理生化特性及调控大鼠肠道菌群、脂质代谢功能的研究进展[J]. 中国食品卫生杂志, 2023, 35(9):1395-1400.

LEI Y, CAO X F, HUANG Z S, et al. Research progress on physiological and biochemical characteristics of Bifidobacterium and its regulation of intestinal flora and lipid metabolism in rats[J]. Chinese Journal of Food Hygiene, 2023, 35(9):1395-1400. (in Chinese)

[20]
MATSUMOTO M, OHISHI H, BENNO Y. H+-ATPase activity in Bifidobacterium with special reference to acid tolerance[J]. International Journal of Food Microbiology, 2004, 93(1):109-113.

[21]
ZHAROVA T V, GRIVENNIKOVA V G, BORISOV V B. F1·F0 ATP synthase/ATPase:contemporary view on unidirectional catalysis[J]. International Journal of Molecular Sciences, 2023, 24(6):5417.

[22]
SÁNCHEZ B, CHAMPOMIER-VERGÈS M C, COLLADO M D C, et al. Low-pH adaptation and the acid tolerance response of Bifidobacterium longum biotype longum[J]. Applied and Environmental Microbiology, 2007, 73(20):6450-6459.

[23]
JIN J H, QIN Q, GUO H Y, et al. Effect of pre-stressing on the acid-stress response in Bifidobacterium revealed using proteomic and physiological approaches[J]. PLoS One, 2015, 10(2):e0117702.

[24]
VENTURA M, TURRONI F, ZOMER A, et al. The Bifidobacterium dentium Bd1 genome sequence reflects its genetic adaptation to the human oral cavity[J]. PLoS Genetics, 2009, 5(12):e1000785.

[25]
YANG X, HANG X M, TAN J, et al. Differences in acid tolerance between Bifidobacterium breve BB8 and its acid-resistant derivative B.breve BB8dpH,revealed by RNA-sequencing and physiological analysis[J]. Anaerobe, 2015, 33:76-84.

[26]
WEI Y X, GAO J, LIU D B, et al. Adaptational changes in physiological and transcriptional responses of Bifidobacterium longum involved in acid stress resistance after successive batch cultures[J]. Microbial Cell Factories, 2019, 18(1):156.

[27]
YANG X, HANG X M, ZHANG M, et al. Relationship between acid tolerance and cell membrane in Bifidobacterium,revealed by comparative analysis of acid-resistant derivatives and their parental strains grown in medium with and without tween 80[J]. Applied Microbiology and Biotechnology, 2015, 99(12):5227-5236.

[28]
GRILL J, SCHNEIDER F, CROCIANI J, et al. Purification and characterization of conjugated bile salt hydrolase from Bifidobacterium longum BB536[J]. Applied and Environmental Microbiology, 1995, 61(7):2577-2582.

[29]
RUIZ L, SÁNCHEZ B, MARGOLLES A. Determination of bile salt hydrolase activity in bifidobacteria[M]// VAN SINDEREN D, VENTURAM. Bifidobacteria.New York: Springer,2021:149-155.

[30]
TANAKA H, HASHIBA H, KOK J, et al. Bile salt hydrolase of Bifidobacterium longum-biochemical and genetic characterization[J]. Applied and Environmental Microbiology, 2000, 66(6):2502-2512.

[31]
RUIZ L, MARGOLLES A, SÁNCHEZ B. Bile resistance mechanisms in Lactobacillus and Bifidobacterium[J]. Frontiers in Microbiology, 2013, 4:396.

[32]
KELLY S M, LANIGAN N, O’NEILL I J, et al. Bifidobacterial biofilm formation is a multifactorial adaptive phenomenon in response to bile exposure[J]. Scientific Reports, 2020, 10(1):11598.

[33]
AN H R, DOUILLARD F P, WANG G H, et al. Integrated transcriptomic and proteomic analysis of the bile stress response in a centenarian-originated probiotic Bifidobacterium longum BBMN68[J]. Molecular & Cellular Proteomics, 2014, 13(10):2558-2572.

[34]
SÁNCHEZ B, CHAMPOMIER-VERGÈS M C, ANGLADE P, et al. Proteomic analysis of global changes in protein expression during bile salt exposure of Bifidobacterium longum NCIMB 8809[J]. Journal of Bacteriology, 2005, 187(16):5799-5808.

[35]
JENA R, SINGH N A, AHMED N, et al. Bifidobacteria in antibiotic-associated dysbiosis:restoring balance in the gut microbiome[J]. World Journal of Microbiology & Biotechnology, 2025, 41(8):297.

[36]
URAIPAN S, HONGPATTARAKERE T. Antagonistic characteristics against food-borne pathogenic bacteria of lactic acid bacteria and bifidobacteria isolated from feces of healthy Thai infants[J]. Jundishapur Journal of Microbiology, 2015, 8(6):e18264.

[37]
TOSCANO M, DE GRANDI R, STRONATI L, et al. Effect of Lactobacillus rhamnosus HN001 and Bifidobacterium longum BB536 on the healthy gut microbiota composition at phyla and species level:a preliminary study[J]. World Journal of Gastroenterology, 2017, 23(15):2696-2704.

[38]
JUNG D H, PARK C S. Resistant starch utilization by Bifidobacterium,the beneficial human gut bacteria[J]. Food Science and Biotechnology, 2023, 32(4):441-452.

[39]
MARTINEZ F A C, BALCIUNAS E M, CONVERTI A, et al. Bacteriocin production by Bifidobacterium spp. A review[J]. Biotechnology Advances, 2013, 31(4):482-488.

[40]
YANG M Z, JIANG Z P, ZHOU L T, et al. 3'-sialyllactose and B.infantis synergistically alleviate gut inflammation and barrier dysfunction by enriching cross-feeding bacteria for short-chain fatty acid biosynthesis[J]. Gut Microbes, 2025, 17(1):2486512.

[41]
WANG R, KUERMAN M, CUI Q Y, et al. Protective effects of Bifidobacterium bifidum FL-228.1 on dextran sulfate sodium-induced intestinal damage in mice[J]. European Journal of Nutrition, 2023, 62(3):1267-1280.

[42]
KOU R X, LI A, YU M, et al. Bifidobacterium bifidum FB3-12 attenuates ovalbumin-induced allergic diseases by enhancing intestinal barrier function and regulating gut microbiota[J]. NPJ Science of Food, 2025, 9(1):227.

[43]
MENG Y, ZHAO M Z, MA Q Y, et al. Bifidobacterium bifidum alleviates adenine-induced acute kidney injury in mice by improving intestinal barrier function[J]. Food & Function, 2024, 15(15):8030-8042.

[44]
ENGEVIK M A, LUK B, CHANG-GRAHAM A L, et al. Bifidobacterium dentium fortifies the intestinal mucus layer via autophagy and calcium signaling pathways[J]. mBio, 2019, 10(3):e01087-19.

[45]
GAVZY S J, KENSISKI A, LEE Z L, et al. Bifidobacterium mechanisms of immune modulation and tolerance[J]. Gut Microbes, 2023, 15(2):2291164.

[46]
ZEUTHEN L H, FINK L N, FRØKIAER H. Toll-like receptor 2 and nucleotide-binding oligomerization domain-2 play divergent roles in the recognition of gut-derived Lactobacilli and Bifidobacteria in dendritic cells[J]. Immunology, 2008, 124(4):489-502.

[47]
LI Y Q, XU H T, ZHOU L Y, et al. Bifidobacterium breve protects the intestinal epithelium and mitigates inflammation in colitis via regulating the gut microbiota-cholic acid pathway[J]. Journal of Agricultural and Food Chemistry, 2024, 72(7):3572-3583.

[48]
CASTRO-BRAVO N, WELLS J M, MARGOLLES A, et al. Interactions of surface exopolysaccharides from Bifidobacterium and Lactobacillus within the intestinal environment[J]. Frontiers in Microbiology, 2018, 9:2426.

[49]
FANNING S, HALL L J, CRONIN M, et al. Bifidobacterial surface-exopolysaccharide facilitates commensal-host interaction through immune modulation and pathogen protection[J]. Proceedings of the National Academy of Sciences, 2012, 109(6):2108-2113.

[50]
FUKUDA S, TOH H, HASE K, et al. Bifidobacteria can protect from enteropathogenic infection through production of acetate[J]. Nature, 2011, 469(7331):543-547.

[51]
EHRLICH A M, PACHECO A R, HENRICK B M, et al. Indole-3-lactic acid associated with Bifidobacterium-dominated microbiota significantly decreases inflammation in intestinal epithelial cells[J]. BMC Microbiology, 2020, 20(1):357.

[52]
TARRACCHINI C, LUGLI G A, MANCABELLI L, et al. Exploring the vitamin biosynthesis landscape of the human gut microbiota[J]. mSystems, 2024, 9(10):e0092924.

[53]
DE BRUYN F, JAMES K, COTTENET G, et al. Combining Bifidobacterium longum subsp. infantis and human milk oligosaccharides synergistically increases short chain fatty acid production ex vivo[J]. Communications Biology, 2024, 7(1):943.

[54]
KIM G, YOON Y, PARK J H, et al. Bifidobacterial carbohydrate/nucleoside metabolism enhances oxidative phosphorylation in white adipose tissue to protect against diet-induced obesity[J]. Microbiome, 2022, 10(1):188.

[55]
HUO Y X, ZHAO G P, LI J W, et al. Bifidobacterium animalis subsp. lactis A6 enhances fatty acid β-oxidation of adipose tissue to ameliorate the development of obesity in mice[J]. Nutrients, 2022, 14(3):598.

[56]
YAN F F, MURUGESAN G R, CHENG H W. Effects of probiotic supplementation on performance traits,bone mineralization,cecal microbial composition,cytokines and corticosterone in laying hens[J]. Animal, 2019, 13(1):33-41.

[57]
ABDEL-MONEIM A M E, ELBAZ A M, KHIDR R E S, et al. Effect of in ovo inoculation of Bifidobacterium spp. on growth performance,thyroid activity,ileum histomorphometry,and microbial enumeration of broilers[J]. Probiotics and Antimicrobial Proteins, 2020, 12(3):873-882.

[58]
MOHAMMED A A, JIANG S, JACOBS J A, et al. Effect of a synbiotic supplement on cecal microbial ecology,antioxidant status,and immune response of broiler chickens reared under heat stress[J]. Poultry Science, 2019, 98(10):4408-4415.

[59]
DEV K, AKBAR MIR N, BISWAS A, et al. Dietary mannan-oligosaccharides potentiate the beneficial effects of Bifidobacterium bifidum in broiler chicken[J]. Letters in Applied Microbiology, 2020, 71(5):520-530.

[60]
CHEN Y H, ZHU F Q, YU G B, et al. Bifidobacterium bifidum postbiotics prevent Salmonella pullorum infection in chickens by modulating pyroptosis and enhancing gut health[J]. Poultry Science, 2025, 104(4):104968.

[61]
YANG L Y, CHEN Y H, BAI Q, et al. Protective effect of Bifidobacterium lactis JYBR-190 on intestinal mucosal damage in chicks infected with Salmonella pullorum[J]. Frontiers in Veterinary Science, 2022, 9:879805.

[62]
陈实, 符臻鸣, 王健, 等. 饲粮中添加不同水平双歧杆菌对脂多糖应激雏鹅回肠损伤的缓解效果[J]. 动物营养学报, 2024, 36(5):3035-3048.

CHEN S, FU Z M, WANG J, et al. Alleviating effects of different dietary levels of Bifidobacterium on ileum injury of goslings under lipopolysaccharide stress[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3035-3048. (in Chinese)

[63]
KHABIROV A, AVZALOV R, TSAPALOVA G, et al. Effect of a probiotic containing lactobacilli and bifidobacteria on the metabolic processes,litter microbiocenosis,and production indicators of broiler Pekin ducklings[J]. Veterinary World, 2022, 15(4):998-1005.

[64]
LOKAPIRNASARI W P, AGUSTONO B, ARIF M A A, et al. Effect of probiotic and Moringa oleifera extract on performance,carcass yield,and mortality of Peking duck[J]. Veterinary World, 2022, 15(3):694-700.

[65]
BARBA-VIDAL E, CASTILLEJOS L, ROLL V F B, et al. The probiotic combination of Bifidobacterium longum subsp. infantis CECT 7210 and Bifidobacterium animalis subsp. lactis BPL6 reduces pathogen loads and improves gut health of weaned piglets orally challenged with Salmonella typhimurium[J]. Frontiers in Microbiology, 2017, 8:1570.

[66]
BARBA-VIDAL E, CASTILLEJOS L, LÓPEZ-COLOM P, et al. Evaluation of the probiotic strain Bifidobacterium longum subsp. infantis CECT 7210 capacities to improve health status and fight digestive pathogens in a piglet model[J]. Frontiers in Microbiology, 2017, 8:533.

[67]
DANIELS V C, MONACO M H, WANG M, et al. Evaluation of 2'-fucosyllactose and Bifidobacterium longum subspecies infantis on growth,organ weights,and intestinal development of piglets[J]. Nutrients, 2021, 14(1):199.

[68]
HE Y W, LIANG J, LIU Y H, et al. Combined supplementation with Lactobacillus sp. and Bifidobacterium thermacidophilum isolated from Tibetan pigs improves growth performance,immunity,and microbiota composition in weaned piglets[J]. Journal of Animal Science, 2023,101:skad220.

[69]
郭东清, 王雪飞, 孙晓磊, 等. 苦豆籽粕-两岐双歧杆菌-唾液乳杆菌合生元对早期断奶仔猪血清生化指标及免疫球蛋白含量的影响[J]. 动物医学进展, 2014, 35(10):38-42.

GUO D Q, WANG X F, SUN X L, et al. Effects of Sophora alopecuroides seed dreg,Bifidobacterium bifidum and Lactobacillus salivaris synbiotics on seral biochemical indexes and immunoglobulins in early-weaned piglets[J]. Progress in Veterinary Medicine, 2014, 35(10):38-42. (in Chinese)

[70]
黄卫强. 益生菌对妊娠后期及哺乳期母猪便秘和免疫功能的影响研究[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2023.

HUANG W Q. Effects of probiotics on the constipation and immunity of sows in late gestation and lactation[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2023. (in Chinese)

[71]
吴占月, 吴森. 添加双歧杆菌对欧拉羊生长性能及粪便微生物多样性的影响[J]. 西南农业学报, 2023, 36(8):1787-1797.

WU Z Y, WU S. Effects of bifidobacterium supplementation on growth performance and fecal microbial diversity of Oula sheep[J]. Southwest China Journal of Agricultural Sciences, 2023, 36(8):1787-1797. (in Chinese)

[72]
曹志坤. 双歧杆菌对湖羊日增重、胃肠道发育和瘤胃微生物区系的影响[D]. 硕士学位论文. 合肥: 安徽农业大学, 2023.

CAO Z K. Effect of Bifidobacterium bifidum on daily weight gain,gastrointestinal development and rumen microbiota of lake sheep[D]. Master’s Thesis. Hefei: Anhui Agricultural University, 2023. (in Chinese)

[73]
PARK H G, HEO W, KIM S B, et al. Production of conjugated linoleic acid (CLA) by Bifidobacterium breve LMC520 and its compatibility with CLA-producing rumen bacteria[J]. Journal of Agricultural and Food Chemistry, 2011, 59(3):984-988.

[74]
SANTILLO A, ANNICCHIARICO G, CAROPRESE M, et al. Probiotics in milk replacer influence lamb immune function and meat quality[J]. Animal, 2012, 6(2):339-345.

[75]
马梦真, 高士孔, 姜悦才, 等. 羊源双歧杆菌预防羔羊大肠埃希氏菌性腹泻的研究[J]. 动物医学进展, 2025, 46(5):60-65.

MA M Z, GAO S K, JIANG Y C, et al. Study on preventive effect of Bifidobacterium from sheep on Escherichia coli diarrhea[J]. Progress in Veterinary Medicine, 2025, 46(5):60-65. (in Chinese)

[76]
GUO Y Q, LI Z, DENG M, et al. Effects of a multi-strain probiotic on growth,health,and fecal bacterial flora of neonatal dairy calves[J]. Animal Bioscience, 2022, 35(2):204-216.

[77]
WÓJCIK R, MAŁACZEWSKA J, TOBOLSKI D, et al. The effect of orally administered multi-strain probiotic formulation (Lactobacillus,Bifidobacterium) on the phagocytic activity and oxidative metabolism of peripheral blood granulocytes and monocytes in lambs[J]. International Journal of Molecular Sciences, 2024, 25(10):5068.

Outlines

/