RESEARCH PAPER

Effects of Cyclic Heat Stress on Growth Performance, Jejunal Morphology and Jejunal Mucosal Transcriptome and Metabolome of Yellow-Feathered Broilers

  • SHAO Dan ,
  • HU Longqing ,
  • GUO Wei ,
  • CHEN Jinglong ,
  • GUO Xuming
Expand
  • Jiangsu Institute of Poultry Science, Yangzhou 225125, China

SHAO Dan, associate professor, E-mail:

Received date: 2026-02-23

  Online published: 2026-08-13

Abstract

This study aimed to investigate the effects of cyclic heat stress on growth performance, jejunal morphology and jejunal mucosal transcriptome and metabolome of yellow-feathered broilers. A total of 120 male fast-growing yellow-feathered broilers aged 35 days with similar body weight were randomly allocated into two groups: a control group and a heat-stressed group. Each group consisted of 6 replicates with 10 birds per replicate. Birds in both groups were fed the same basal diet. The control group was reared at 26 ℃, whereas the heat-stressed group was subjected to a 7-day gradual temperature increase followed by a 14-day cyclic heat stress (32 to 35 ℃). The results showed as follows: 1) in comparison with the control group, the body weight at 56 days of age, average daily feed intake and average daily gain of broilers in the heat stress group decreased significantly (P<0.05), and the feed to gain ratio increased significantly (P<0.05). In addition, the jejunal villi in the heat-stressed group appeared sparse and fractured, and both villus height and the ratio of villus height to crypt depth were significantly reduced compared with the control group (P<0.05). 2) The jejunal mucosa transcriptome analysis showed that a total of 325 differentially expressed genes (DEGs) between the two groups were identified, which were mainly enriched in pathways such as C5-branched dibasic acid metabolism, cytokine-cytokine receptor interaction and cell adhesion molecules. Notably, the expression of genes C-C motif chemokine ligand 19 (CCL19), C-C motif chemokine ligand 21 (CCL21), interleukin-1 receptor 2 (IL1R2) and citrate decarboxylase 1 (ACOD1) were significantly upregulated in the heat-stressed group. 3) The jejunal mucosal metabolome analysis showed that a total of 16 differentially expressed metabolites (DEMs) between the two groups were identified. The levels of metabolites such as 1-palmitoyl-2-octadecenoic-sn-glycerol-3-phosphocholine, 2-oilyl-1-palmitoyl-sn-glycerol-3-phosphocholine, ethyl sulfate, α-ketoglutaric acid and biliverdin were significantly upregulated in the heat-stressed group. 4) The integrated transcriptomic and metabolomic analysis revealed that DEGs and DEMs in jejunal mucosa were co-significantly enriched in the C5-branched dibasic acid metabolism pathway. Correlation analysis further suggested that ACOD1 gene may mediate this pathway to regulate α-ketoglutarate production, thereby participating in the maintenance of energy and immune homeostasis. In summary, cyclic heat stress can induce metabolic and immune disorders in the jejunal mucosa of yellow feathered broilers, as evidenced by the enhancement of the C5 branched dibasic acid metabolism pathway and the activation of immune inflammatory pathways such as cytokine cytokine receptor interaction. These changes subsequently trigger intestinal immune and inflammatory responses, leading to jejunal villous atrophy and nutrient malabsorption, and ultimately suppressing growth performance.

Cite this article

SHAO Dan , HU Longqing , GUO Wei , CHEN Jinglong , GUO Xuming . Effects of Cyclic Heat Stress on Growth Performance, Jejunal Morphology and Jejunal Mucosal Transcriptome and Metabolome of Yellow-Feathered Broilers[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 5734 -5745 . DOI: 10.12418/CJAN2026.460

热应激是高温环境下,动物失去体热平衡而产生非特异应答[1]。随着全球气候持续变暖,夏季极端高温天气日益频发,加之肉鸡品种长期向高效生长方向选育,以及集约化饲养模式的普遍推广,当前肉鸡对高温环境的敏感性增强,热应激发生风险大幅上升[2]。这一问题已成为现代肉鸡养殖业面临的主要环境应激挑战之一。黄羽肉鸡是我国南方地区广泛养殖的本土品种,其肉质鲜美,市场需求量高。然而,我国南方地区夏季高温期长达3个月以上,加之黄羽肉鸡生长周期较长、普遍采用地面散养模式,环境调控能力薄弱,致使夏季高温时极易产生热应激。此外,黄羽肉鸡体表羽毛丰厚且无汗腺,代谢旺盛,体温偏高,对高温环境极为敏感,致使热应激反应尤为剧烈,轻则生长性能下降,重则造成死亡[3]。黄羽肉鸡遭受热应激时,机体出于自我保护的目的重新分配体内血流量,急剧减少流经肠道(应激反应的核心靶器官)的血流量[4],造成肠道严重缺血缺氧,引起肠上皮细胞脱落、肠道屏障功能被破坏等现象,进而导致肠道损伤和消化吸收功能下降,最终引起生长性能下降、免疫抑制及多种疾病发生[5-6]。肠道作为机体消化和吸收营养物质的主要场所,不仅为肉鸡各种生命活动提供物质基础,还承担着重要的屏障保护功能[7],同时也是热应激条件下损伤最为敏感的靶器官之一[8]。其中,空肠组织在热应激条件下的功能状态直接影响机体对营养物质的消化、吸收与利用效率[9]。尽管现有的研究为热应激下肉鸡肠道损伤提供了基础数据,但热应激引起的生产性能下降与肠道损伤之间的相互关系及作用机制尚未十分明确,而且目前大量的研究主要集中于热应激对家禽自身生产性能、肠道生理生化等的影响及营养调控作用,而有关热应激引起的肠道转录组及代谢组水平的变化鲜有研究。基于此,本试验以黄羽肉鸡为研究对象,在循环热应激处理后测定生长性能、空肠组织形态等指标,并结合转录组测序(RNA-Seq)及液相色谱-质谱联用(LC-MS)技术分析热应激下黄羽肉鸡空肠黏膜转录组及代谢组的变化,以期为寻找缓解黄羽肉鸡热应激肠道损伤的有效方法提供理论依据。

1 材料与方法

1.1 试验设计

本试验经江苏省家禽科学研究所实验动物福利与动物实验伦理审查委员会批准(No.2025-0020)。
热应激试验在江苏省家禽科学研究所仪征基地环境控制舱(北京库蓝科技有限公司)中进行。选取体重相近的120只35日龄雄性快速型黄羽肉鸡(购于江苏立华牧业股份有限公司),随机分为2组,每组6个重复,每个重复10只。其中,常温对照组饲喂基础饲粮,环境温度设置为26 ℃;热应激组饲喂相同的基础饲粮,先经7 d的预试期(渐进升温),而后进行14 d的循环热应激处理。预试期第1天具体温度设置如下:00:00—06:00,26 ℃;06:00—10:00,27 ℃;10:00—16:00,28 ℃;16:00—20:00,27 ℃;20:00—00:00,26 ℃,随后每天每个阶段都增加1 ℃;14 d的循环热应激处理具体温度设置如下:00:00—06:00,32 ℃;06:00—10:00,34 ℃;10:00—16:00,35 ℃;16:00—20:00,34 ℃;20:00—00:00,32 ℃。

1.2 饲养管理

试验鸡饲养于3层层叠笼(100 cm×80 cm×45 cm)中,自由采食和饮水,采用连续光照(23 h光照:1 h黑暗),光照强度为10 lx,控制舱内相对湿度维持在(60±5)%。基础饲粮参照《黄羽肉鸡营养需要量》(NY/T 3645—2020)配制并制粒,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 67.35
豆粕 Soybean meal (43%) 22.70
玉米蛋白粉 Corn gluten meal 3.00
大豆油 Soybean oil 3.50
石粉 Limestone 1.30
磷酸氢钙 CaHPO4 0.78
蛋氨酸 Met 0.25
赖氨酸 Lys 0.32
苏氨酸 Thr 0.15
植酸酶 Phytase 0.03
食盐 NaCl 0.30
氯化胆碱 Choline chloride 0.09
微量元素预混料 Microelement premix1) 0.20
维生素预混料 Vitamin premix2) 0.03
合计 Total 100.00
营养水平 Nutrient levels3)
代谢能 ME/(MJ/kg) 13.00
粗蛋白质 CP 17.96
钙 Ca 0.66
总磷 TP 0.41
有效磷 AP 0.28

1)微量元素预混料为每千克饲粮提供Microelement premix provided the following per kg of the diet:Mn 60 mg,I 0.35 mg,Fe 25 mg,Cu 8 mg,Zn 50 mg。

2)维生素预混料为每千克饲粮提供Vitamin premix provided the following per kg of the diet:VA 4 000 IU,VD3 1 600 IU,VK3 1.5 mg,VB1 1.0 mg,VB2 3.0 mg,VB6 3.0 mg,VB12 0.005 mg,泛酸 pantothenic acid 8.0 mg,烟酸 nicotinic acid 20 mg,叶酸 folic acid 20 mg。

3)代谢能和有效磷参照NY/T 3645—2020计算,粗蛋白质、钙和总磷分别依据GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018测定。ME and AP were calculated according to NY/T 3645—2020, while CP, Ca and TP were measured in accordance with GB/T 6432—2018, GB/T 6436—2018 and GB/T 6437—2018, respectively.

1.3 样品采集及处理

热应激试验结束后,每个重复随机挑选1只接近平均体重的试验鸡,放血处死后迅速进行解剖分离空肠,从卵黄柄向前10 cm处采集近1.5 cm肠段置于10%多聚甲醛溶液中,用于后续苏木精-伊红(HE)染色切片制作;剪开剩余空肠肠段,用载玻片轻轻刮取空肠黏膜,放入液氮中速冻后转至-80 ℃超低温冰箱中保存,用于后续转录组和代谢组分析。

1.4 指标测定与方法

1.4.1 生长性能

分别于试验开始时(36日龄)和试验结束当天(56日龄)08:00空腹称体重;从预试期到循环热应激结束,以重复为单位,详细记录每天的采食量。以重复为单位计算从预试期到循环热应激结束的耗料量和体增重,计算试验期内的平均日采食量(ADFI)、平均日增重(ADG)和料重比(F/G)。

1.4.2 空肠组织形态

空肠组织经10%多聚甲醛溶液固定后,依次进行脱水、石蜡包埋、切片和HE染色。使用BX43显微镜(Olympus,日本)对HE染色切片进行观察,并利用Image J软件随机选取5个视野,分别测量绒毛高度和隐窝深度,并计算绒毛高度/隐窝深度比值。

1.4.3 空肠黏膜转录组测序

使用TRIzol试剂盒(Invitrogen,美国)提取空肠黏膜组织中的总RNA,经质检合格后,采用Oligo(dT)法分离mRNA,并进行片段化处理,用于构建cDNA文库;cDNA文库经质检合格后,采用Illumina NovaSeq X Plus测序平台(Illumina,美国)进行测序,由广州奥智生物科技有限公司完成。对测序获得的原始数据(raw reads)进行质量控制,去除接头序列,并过滤掉低质量及含N(未知碱基)比例大于10%的reads后,得到高质量序列(clean reads),用于后续分析。
利用HISAT2软件[10]将clean reads比对至鸡参考基因组(Ensembl release 112)。基于比对结果,采用RSEM软件[11]计算每个样本中所有基因的FPKM值。采用edgeR软件[12]进行组间差异表达基因筛选,以错误发现率(FDR)<0.05且|log2差异倍数(FC)|>1作为差异显著性阈值。对筛选所得的差异表达基因,基于GO数据库(http://www.geneontology.org)和KEGG数据库(http://www.genome.jp/kegg)进行基因功能注释及富集分析。

1.4.4 空肠黏膜代谢组测序

取空肠黏膜组织样品约100 mg,匀浆破碎后离心取上清液,经真空干燥后,采用Agilent 1290 Infinity LC超高效液相色谱仪(Agilent Technologies,美国)进行色谱分析。为避免仪器检测信号波动造成的影响,采用随机顺序对样本进行连续分析,并在样本队列中插入质量控制(QC)样品,用于监测和评价系统的稳定性及试验数据的可靠性。经超高效液相色谱分离后,采用AB Triple TOF 6600质谱仪(AB Sciex,美国)进行质谱分析。质谱下机原始数据经ProteoWizard软件转换为.MzML格式,然后采用XCMS程序进行峰对齐、保留时间校正和峰面积提取。对XCMS程序提取得到的数据,依次进行代谢物结构鉴定和数据预处理(空值过滤:删除缺失值>50%的离子峰;空值填充:KNN填充:数据过滤:过滤RSD>50%的feature),随后进行主成分分析(PCA)和偏最小二乘判别分析(PLS-DA)。结合正交偏最小二乘判别分析(OPLS-DA)的变量投影重要性(VIP)值(VIP≥1)和单变量统计分析t检验的P值(P<0.05),筛选组间存在显著差异的代谢物。最终,对筛选出的差异表达代谢物进行KEGG通路富集分析,以P<0.05作为通路显著富集的判断标准。

1.4.5 转录组与代谢组联合分析

基于转录组和代谢组分析结果,将转录组筛选的差异表达基因与代谢组筛选的差异代谢物进行KEGG通路整合分析,以获得共同富集的通路。将富集通路上的差异表达基因和差异代谢物分别与生长性能指标进行皮尔逊相关性分析。

1.5 数据统计与分析

数据经Excel 2010初步整理后,采用SPSS 20.0软件进行统计分析。组间差异比较采用独立样本t检验,结果以平均值±标准误表示,统计学差异显著水平定为P<0.05。

2 结果与分析

2.1 循环热应激对黄羽肉鸡生长性能的影响

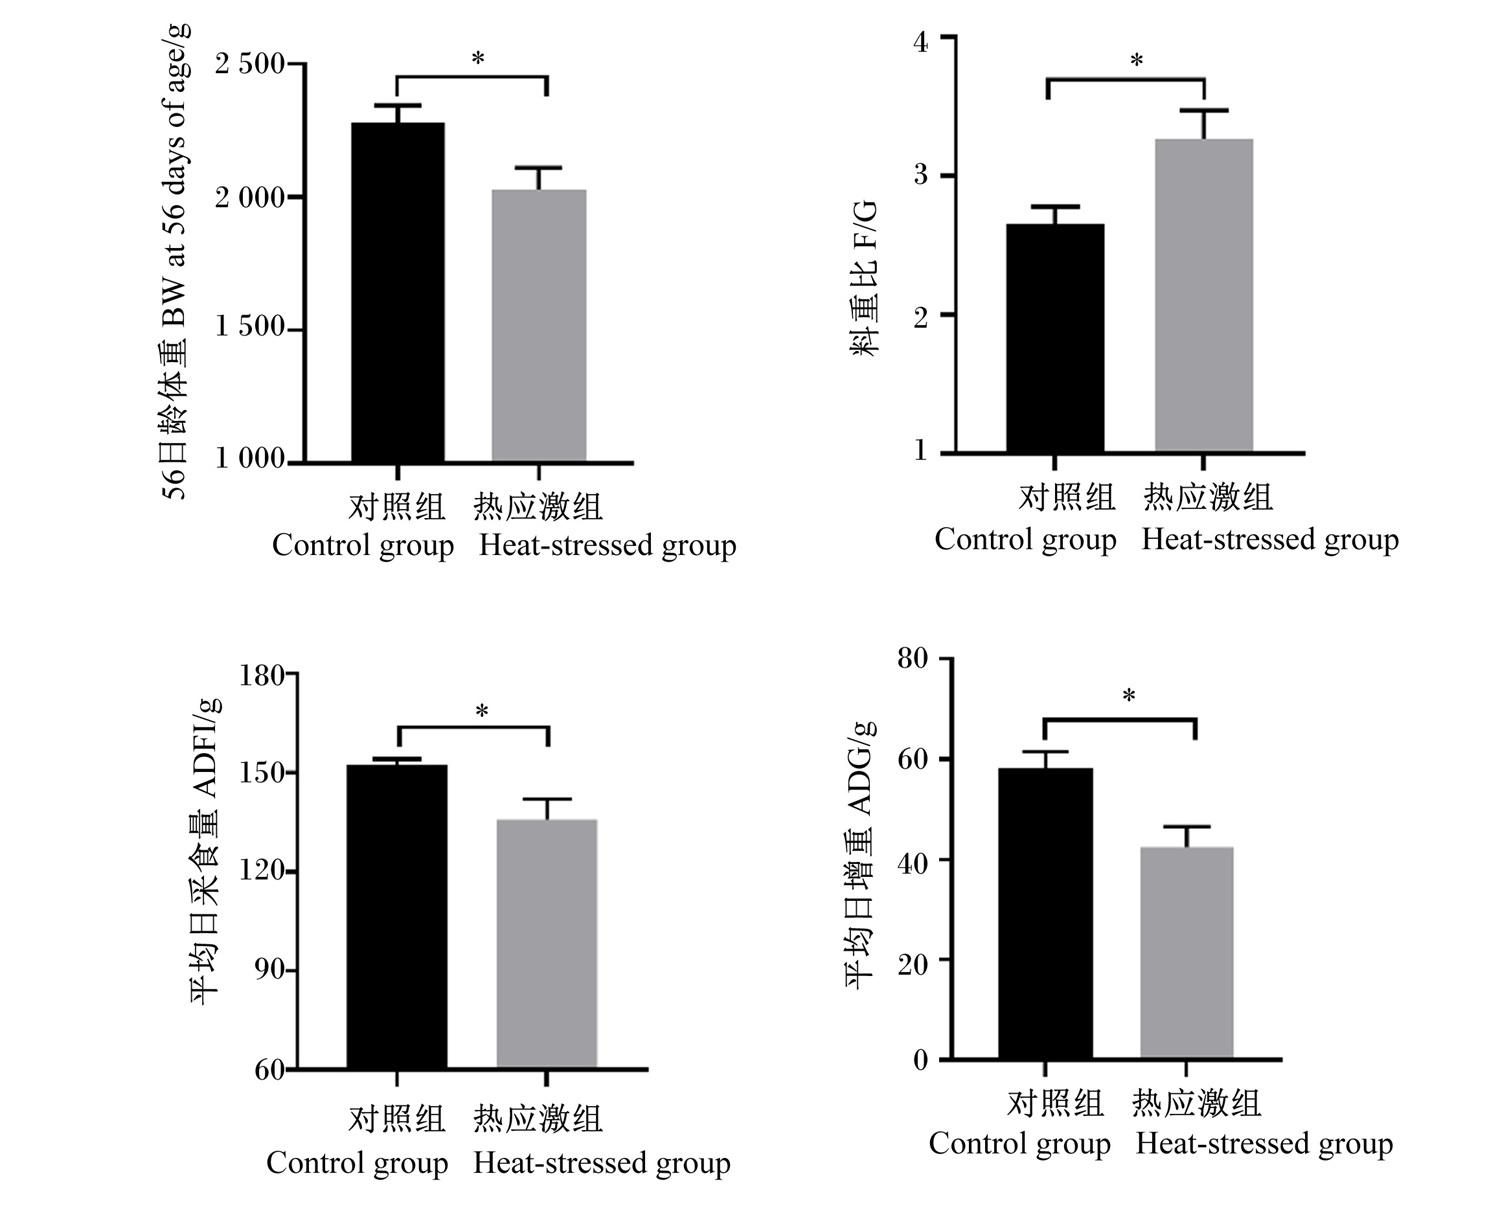
图1可知,与对照组相比,热应激组黄羽肉鸡56日龄体重、平均日采食量和平均日增重显著下降(P<0.05),料重比显著增加(P<0.05)。
图1 循环热应激对黄羽肉鸡生长性能的影响

*表示组间差异显著(P<0.05)。图2同。

Fig.1 Effects of cyclic heat stress on growth performance of yellow-feathered broilers

* indicated significant difference between groups (P<0.05). The same as Fig.2.

2.2 循环热应激对黄羽肉鸡空肠组织形态的影响

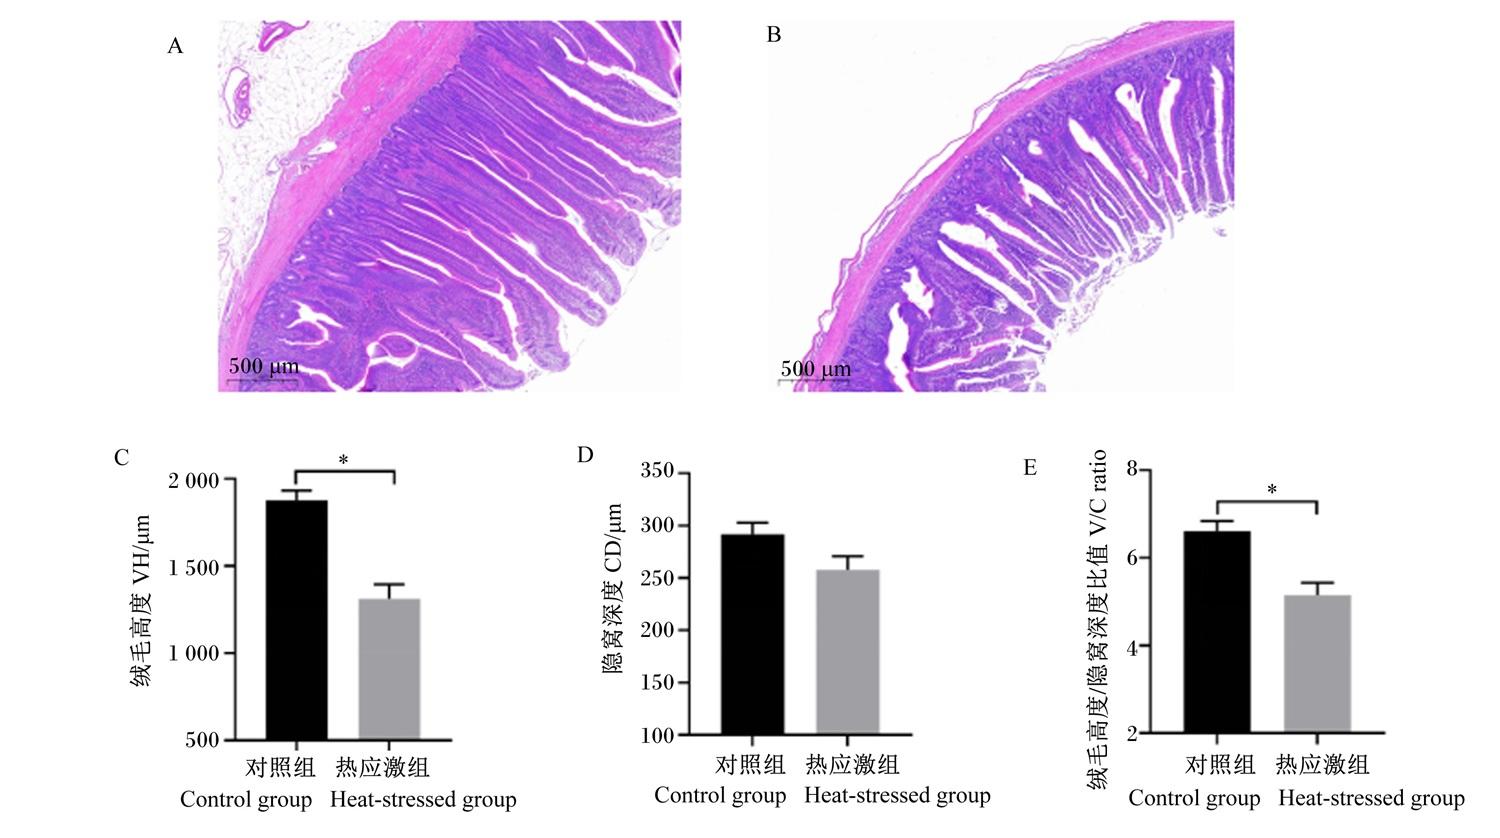
图2-A图2-B可知,循环热应激下黄羽肉鸡空肠出现绒毛断裂、稀疏和缩短等现象;由图2-C图2-D图2-E可知,与对照组相比,热应激组黄羽肉鸡空肠绒毛高度和绒毛高度/隐窝深度比值显著降低(P<0.05),而隐窝深度无显著变化(P>0.05)。
图2 循环热应激对黄羽肉鸡空肠组织形态的影响

A:对照组空肠组织的显微结构 jejunal microstructure of control group;B:热应激组空肠组织的显微结构 jejunal microstructure of heat-stressed group。

Fig.2 Effects of cyclic heat stress on jejunal morphology of yellow-feathered broilers

2.3 循环热应激对黄羽肉鸡空肠黏膜转录组的影响

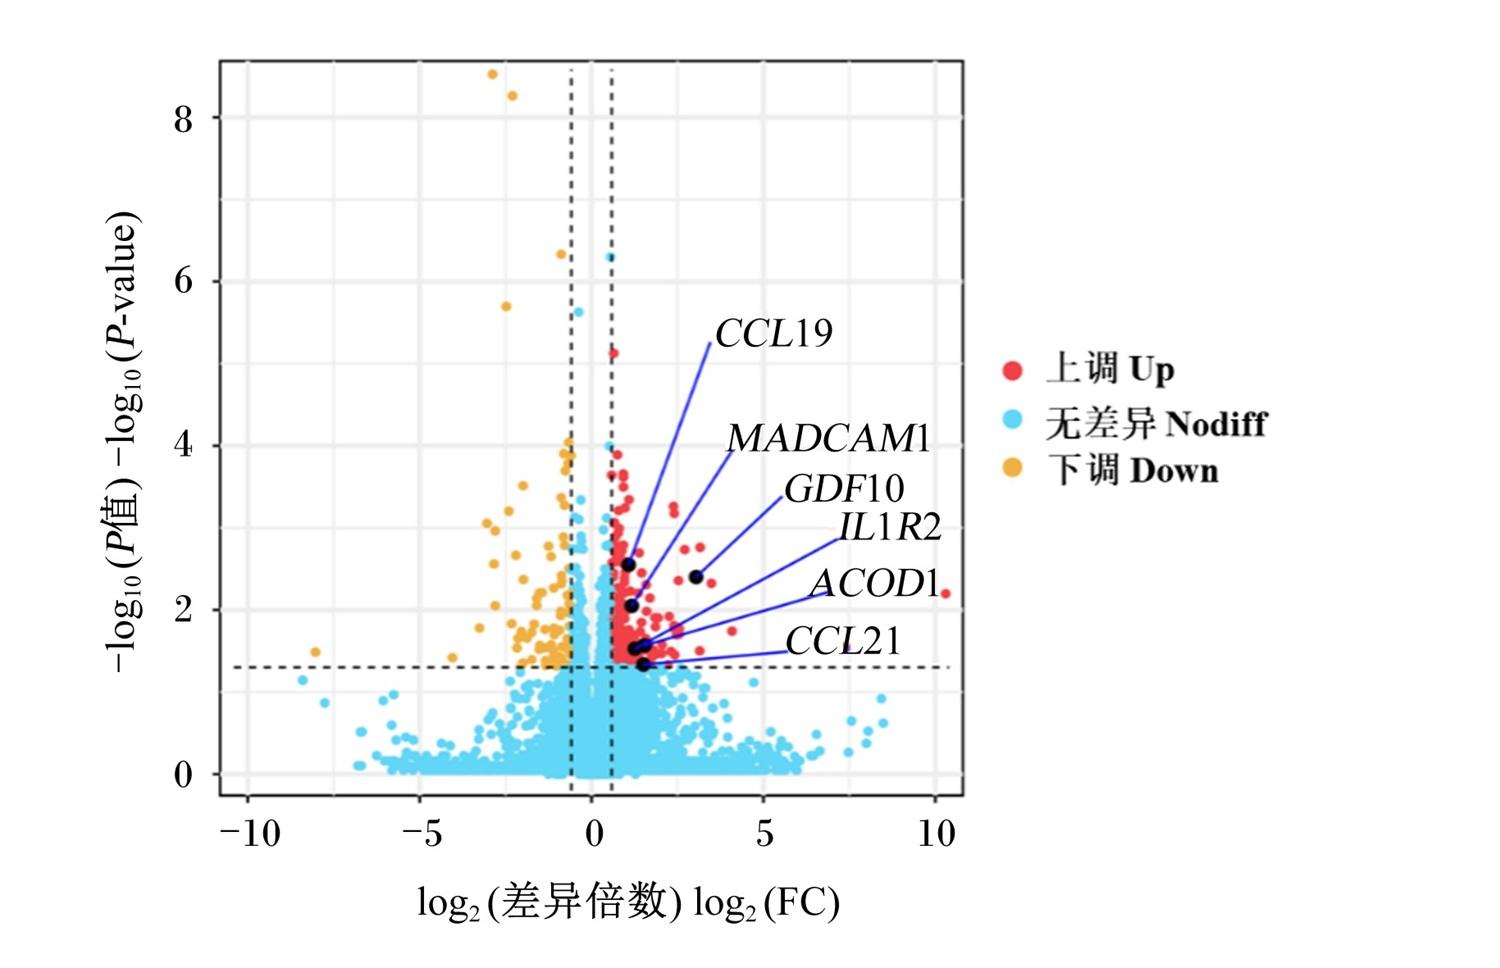
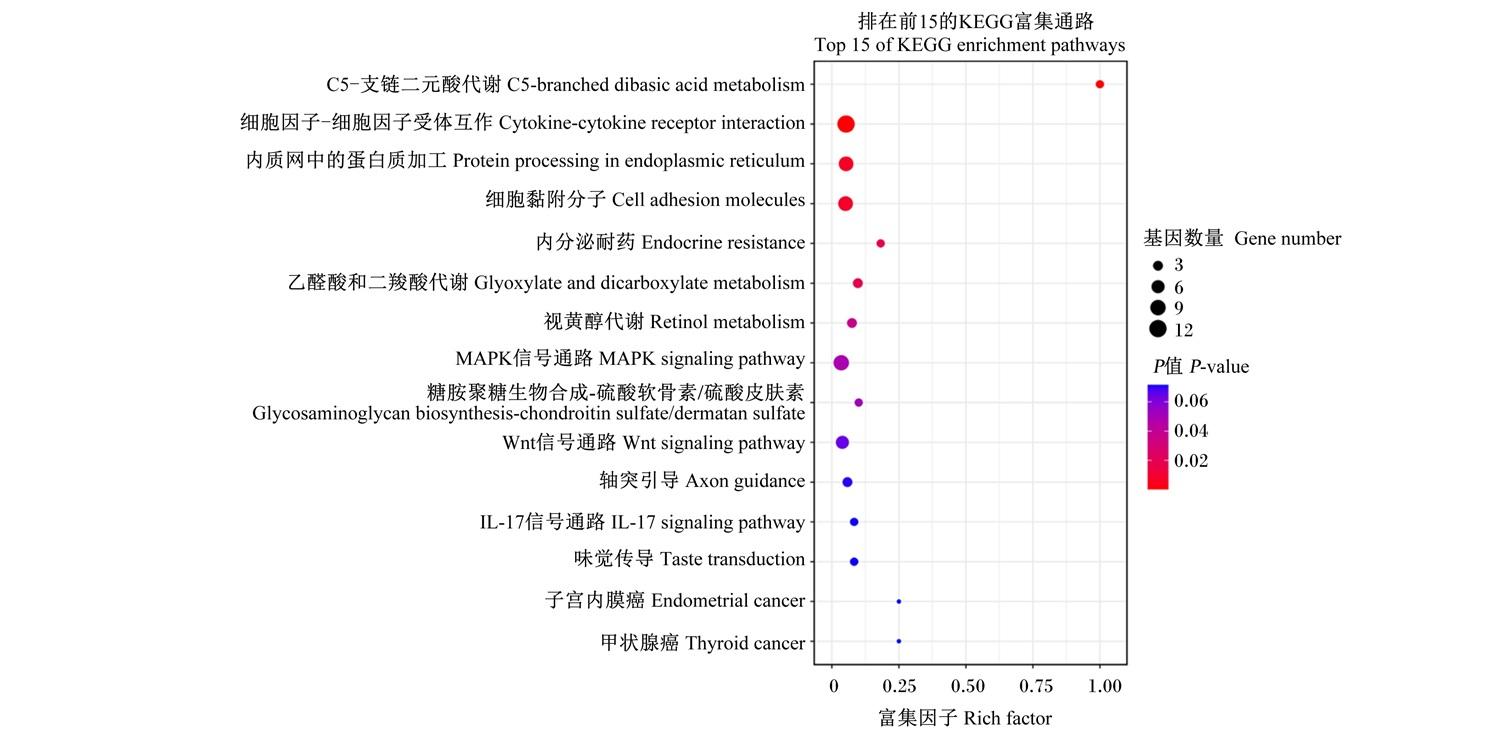
为探究循环热应激对黄羽肉鸡空肠黏膜组织基因表达谱的影响,以FDR<0.05和|log2(FC)|>1为筛选标准,对照组与热应激组之间共筛选到325个差异表达基因,其中上调的有242个,下调的有83个(图3)。为探索筛选的差异表达基因发挥的生物学功能,对差异表达基因进行KEGG通路富集分析,显著富集的前15条通路如图4所示,主要富集在C5-支链二元酸代谢、细胞因子-细胞因子受体相互作用、细胞黏附分子、乙醛酸和二羧酸代谢、丝裂原活化蛋白激酶(MAPK)信号通路、白细胞介素-17(IL-17)信号通路等通路,其中显著富集通路上与免疫炎症相关的基因C-C基序趋化因子配体19(CCL19)、C-C基序趋化因子配体21(CCL21)、白细胞介素-1受体2(IL1R2)、柠檬酸酯脱羧酶1(ACOD1)、黏膜血管寻址素细胞黏附分子1(MADCAM1)、生长分化因子10(GDF10)等在热应激组显著上调。
图3 空肠黏膜差异表达基因火山图

CCL19:C-C基序趋化因子配体19 C-C motif chemokine ligand 19;MADCAM1:黏膜血管寻址素细胞黏附分子1 mucosal vascular addressin cell adhesion molecule 1;GDF10:生长分化因子10 growth differentiation factor 10;IL1R2:白细胞介素-1受体2 interleukin-1 receptor type 2;ACOD1:柠檬酸酯脱羧酶1 aconitate decarboxylase 1;CCL21:C-C基序趋化因子配体21 C-C motif chemokine ligand 21。

Fig.3 Volcano plots of DEGs in jejunal mucosa

图4 空肠黏膜差异表达基因显著富集的前15条KEGG通路气泡图

Fig.4 Bubble map of top 15 significantly enriched KEGG pathways of DEGs in jejunal mucosa

2.4 循环热应激对黄羽肉鸡空肠黏膜代谢组的影响

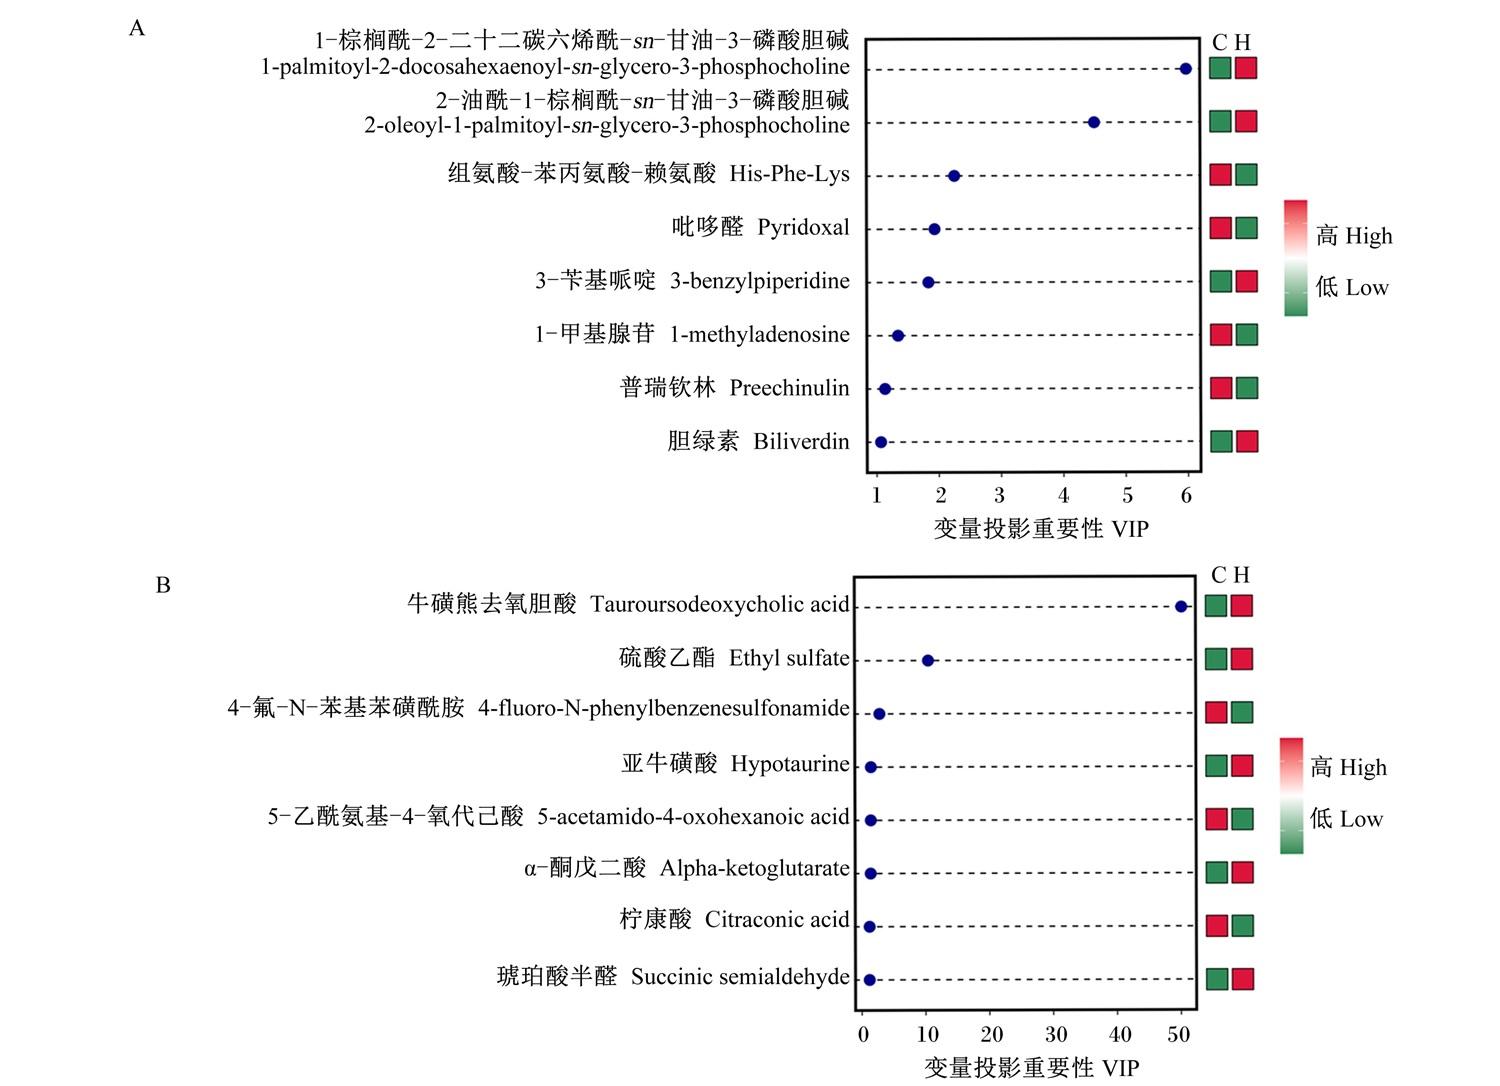
对空肠黏膜组织进行LC-MS检测,在正离子、负离子模式下分别检测到8个差异表达代谢物,共检测到16个差异表达代谢物(图5),其中,上调的有9个,分别为1-棕榈酰-2-二十二碳六烯酰-sn-甘油-3-磷酰胆碱、2-油酰-1-棕榈酰-sn-甘油-3-磷酰胆碱、3-苄基哌啶、胆绿素、牛磺熊去氧胆酸、硫酸乙酯、α-酮戊二酸、亚牛磺酸和琥珀酸半醛;下调的有7个,分别为组氨酸-苯丙氨酸-赖氨酸、吡哆醛、1-甲基腺苷、普瑞钦林、4-氟-N-苯基苯磺酰胺、5-乙酰氨基-4-氧代己酸和柠康酸。对差异表达代谢物进行KEGG通路富集分析,显著富集的通路包括维生素B6代谢、丁酸盐代谢、C5-支链二元酸代谢、牛磺酸和次牛磺酸代谢、碳代谢以及缺氧诱导因子-1(HIF-1)信号通路等通路(表2)。
图5 空肠黏膜差异表达代谢物VIP图

C:对照组 control group;H:热应激组 heat-stressed group。

Fig.5 VIP plots of DEMs in jejunal mucosa

表2 空肠黏膜差异表达代谢物显著富集的KEGG通路

Table 2 Significantly enriched KEGG pathways of DEMs in jejunal mucosa

通路名称
Pathway names
P
P-value
差异表达
代谢物数目
DEMs number
维生素B6代谢 Vitamin B6 metabolism 0.002 2
丁酸盐代谢 Butanoate metabolism 0.005 2
C5-支链二元酸代谢 C5-branched dibasic acid metabolism 0.006 2
牛磺酸和次牛磺酸代谢 Taurine and hypotaurine metabolism 0.008 2
丙氨酸、天冬氨酸和谷氨酸代谢 Alanine, aspartate and glutamate metabolism 0.009 2
碳代谢 Carbon metabolism 0.032 2
HIF-1信号通路 HIF-1 signaling pathway 0.043 1
近端小管碳酸氢盐回收 Proximal tubule bicarbonate reclamation 0.043 1

2.5 转录组与代谢组联合分析

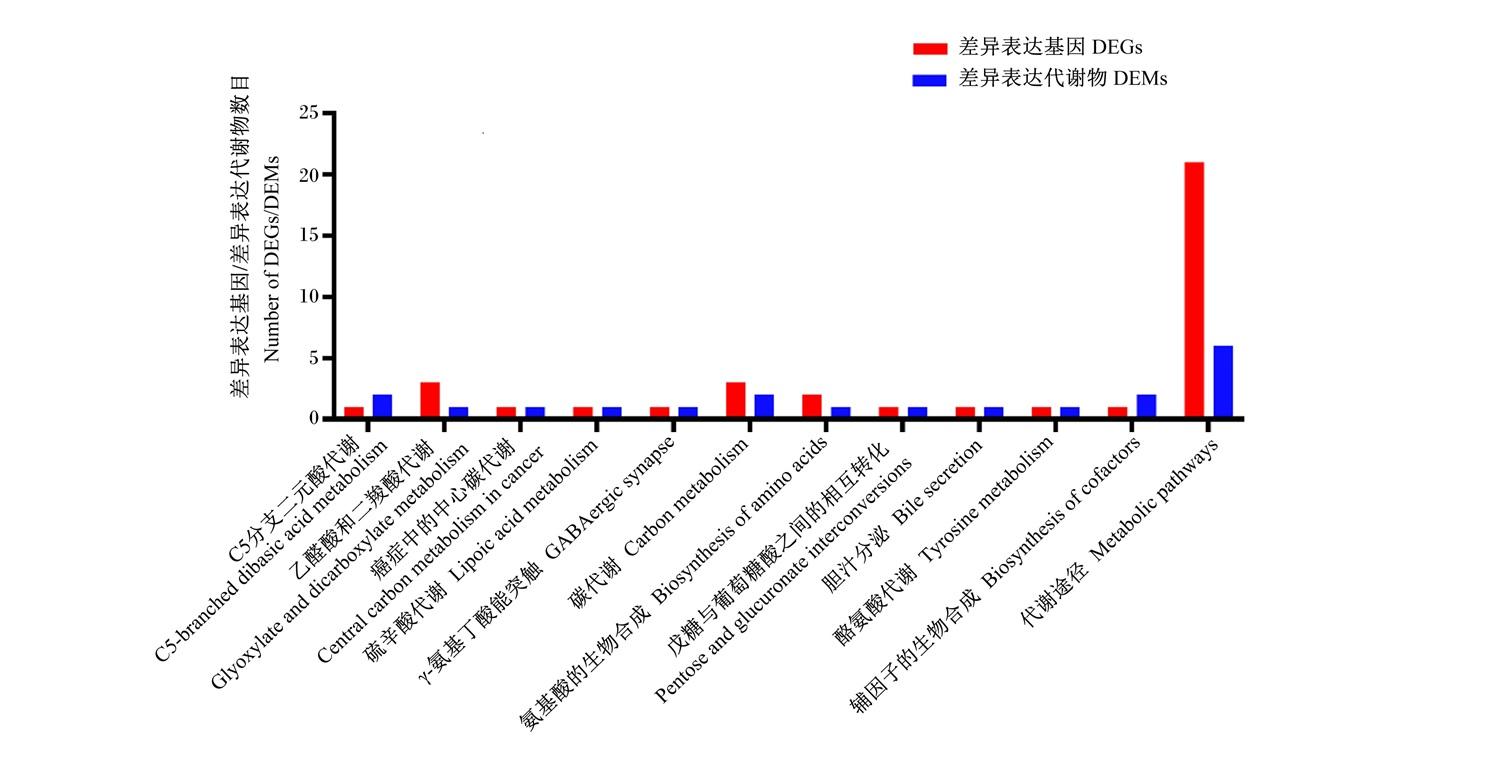
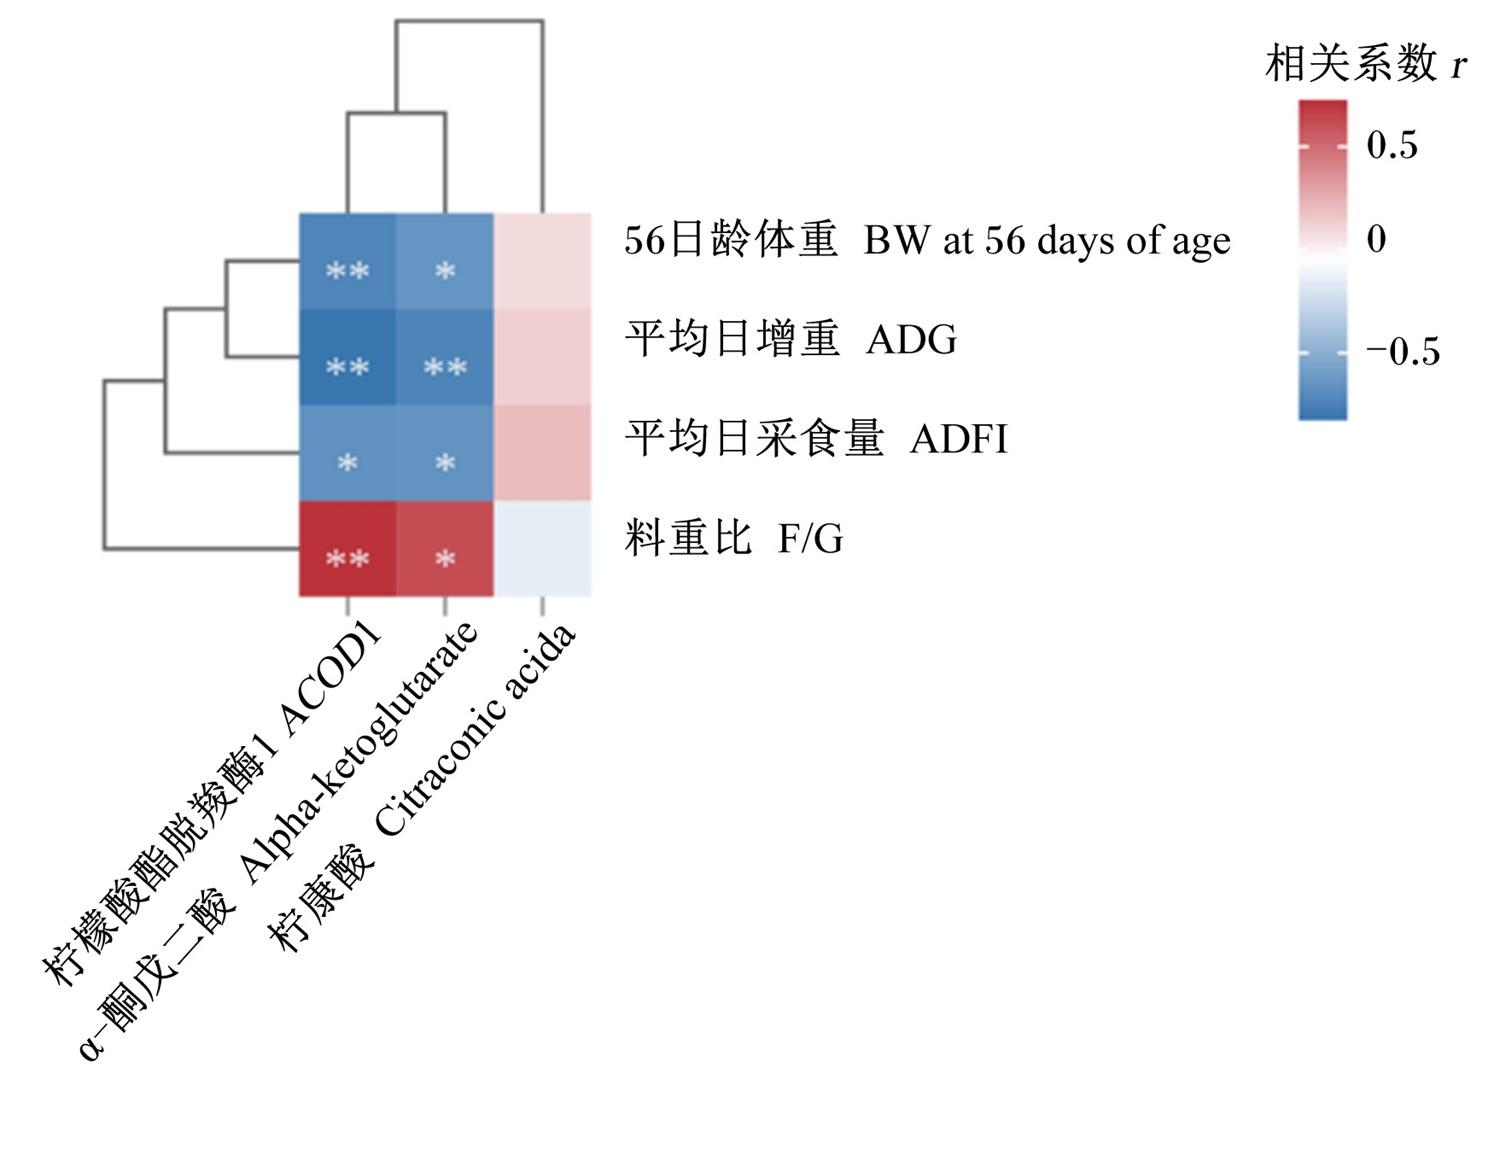
遭受循环热应激后,在黄羽肉鸡空肠黏膜中鉴定到的差异表达代谢物与差异表达基因共同参与的KEGG通路依次为C5-支链二元酸代谢、乙二酸和二羧酸代谢、癌症中心的碳代谢、硫辛酸代谢、γ-氨基丁酸能突触、碳代谢、氨基酸的生物合成、戊糖与葡萄糖酸之间的相互转化、胆汁分泌、酪氨酸代谢、辅因子的生物合成、新陈代谢途径(图6),其中C5-支链二元酸代谢(ko00660)为唯一显著富集的通路(P<0.05),在该通路上共注释到1个差异表达基因(ACOD1)和2个差异代谢物(α-酮戊二酸、柠康酸)(表3)。将该通路上的差异表达基因和差异表达代谢物与生长性能进行相关性分析,发现ACOD1、α-酮戊二酸与56日龄体重、平均日增重、平均日采食量和料重比呈显著或极显著相关(图7)。
图6 差异表达基因和差异表达代谢物共同参与的KEGG通路

Fig.6 KEGG pathways in terms of DEGs and DEMs involved together

表3 转录组和代谢组共同显著富集KEGG通路中的差异表达基因与差异代谢物

Table 3 DEGs and DAMs of co-enriched KEGG pathways from transcriptome and metabolome

通路名称
Pathway name
差异表达基因数目和名称
DEGs numuber
and name
差异表达代谢物数目和名称
DEMs numuber
and name
通路ID
Pathway ID
C5-支链二元酸代谢
C5-branched dibasic acid metabolism
1个:柠檬酸酯脱羧酶1 2条:α-酮戊二酸、柠康酸 ko00660
图7 C5-支链二元酸代谢通路中差异表达基因和差异表达代谢物与生长性能的相关性热图

“*”表示显著相关(P<0.05),“**”表示极显著相关(P<0.01)。

Fig.7 Correlation heatmap of DEGs and DEMs in C5-branched dibasic acid metabolism pathway with growth performance

“*” indicated significant correlation (P<0.05), and “**” indicated extremely significant correlation (P<0.01).

3 讨论

家禽遭受热应激后,机体体温调节平衡破坏,代谢紊乱,造成生产性能、健康和福利状况下降[13],其中生长性能作为评价肉鸡生产效率的关键指标备受关注。本试验结果显示,循环热应激使得黄羽肉鸡生长性能下降,伴随着平均日增重、平均日采食量显著下降,而料重比显著升高,这与钟光等[14]的研究结果一致。当机体遭受热应激时,会适应性地通过减少采食量来减少机体代谢产热,进而缓解热应激带来的体温升高[15]。此外,在热应激期间,补偿机制会通过引导内脏血液流动使内源性热量流向皮肤的方式来保护重要器官[16],因此肠道血流量会减少,进而引发肠道缺氧,造成肠道损伤[17]。而肠道作为家禽热应激反应最敏感的器官,其健康状况直接影响着家禽的代谢和免疫功能[18]。本研究发现,循环热应激造成了黄羽肉鸡空肠绒毛形态结构的损伤,且绒毛高度显著降低,这会降低肉鸡肠道中消化酶的活性[19],降低肠道对营养物质的吸收能力,进而影响肉鸡的生长性能,与郭长征等[20]试验结果一致。因此,肉鸡遭遇热应激时维护好肠道的健康状态尤为重要。
空肠黏膜转录组结果显示,在对照组与热应激组之间共鉴定到325个差异表达基因,显著富集在C5-支链二元酸代谢、细胞因子-细胞因子受体相互作用、细胞黏附分子等通路。细胞因子-细胞因子受体相互作用通路重点参与炎症反应和免疫过程[21],本试验中CCL19、CCL21、IL1R2表达上调,均显著富集于细胞因子-细胞因子受体相互作用通路。CCL19、CCL21是C-C基序趋化因子配体家族的一员,它们均能与其受体结合并相互作用,引发免疫炎症反应[22-23]。其中,CCL19是机体内诱导免疫耐受和炎症反应的关键调节因子[24],有学者认为CCL19可能是炎症反应的标志物[25]
研究表明,CCL19基因在大豆抗原诱导的仔猪肠道损伤起关键作用,沉默CCL19基因的表达后,能降低肠细胞中白细胞介素-6(IL-6)、肿瘤坏死因子-α(TNF-α)、核因子-κB(NF-κB)的水平来缓解肠细胞炎性损伤[26]。还有报道指出,在卵清蛋白(OVA)诱导的支气管哮喘小鼠模型中,经抗炎治疗后,随着体内免疫炎症反应被抑制,CCL19和CCL21的表达均显著下调[27]。另有研究证实,通过抑制CCL21的表达,溃疡性结肠炎小鼠的肠道组织损伤得到缓解[28]。IL1R2是一种白细胞介素-1诱饵受体,在炎症或免疫调节方面发挥作用[29]。研究表明,过表达IL1R2后,肺癌细胞A549细胞中白细胞介素-1β(IL-1β)、TNF-α等炎症因子的表达上调,促进癌细胞增殖和迁移[30]。本试验中,热应激组空肠黏膜中CCL19、CCL21、IL1R2表达上调,说明循环热应激引发了黄羽肉鸡肠道的炎症反应。此外,定位于C5-支链二元酸代谢通路上的ACOD1基因是炎症和感染中的免疫代谢调节因子,当免疫细胞在细胞因子等刺激下被激活,ACOD1会高表达[31],而本试验中ACOD1在热应激组表达上调,进一步推测黄羽肉鸡遭受循环热应激过程时,空肠组织免疫应答和炎症反应被激活。
空肠黏膜代谢组结果显示,对照组与热应激组之间共鉴定到16个差异表达代谢物,其中1-棕榈酰-2-二十二碳六烯酰-sn-甘油-3-磷酰胆碱、2-油酰-1-棕榈酰-sn-甘油-3-磷酰胆碱、胆绿素、硫酸乙酯、α-酮戊二酸等表达上调。磷脂酰胆碱是动物细胞膜最丰富的磷脂,对维持细胞膜稳定性和缓解炎性损伤至关重要[32]。研究表明,肠道黏膜中磷脂酰胆碱的耗竭是溃疡性结肠炎等炎症性肠病的显著特征,这种耗竭会削弱肠道屏障功能,加剧炎症[33]。与段玉婷[34]发现的花斑裸鲤肝脏急性热应激后磷酸胆碱水平降低的“消耗”现象相反,本试验发现热应激组黄羽肉鸡空肠黏膜中磷脂酰胆碱(1-棕榈酰-2-二十二碳六烯酰-sn-甘油-3-磷酰胆碱、2-油酰-1-棕榈酰-sn-甘油-3-磷酰胆碱)水平显著升高,推测这可能是机体在热应激诱导的肠道损伤压力下启动的一种适应性或代偿性防御反应,即通过主动上调磷脂酰胆碱的生物合成或减少其分解,以抵抗应激并缓解潜在的炎性损伤。硫酸乙酯的直接前体为乙醇,而乙醇主要由肠道微生物通过碳水化合物发酵产生。热应激会破坏家禽肠道菌群稳态[35],导致微生物代谢途径改变,菌群失调极易导向异常发酵,产生包括乙醇在内的多种代谢物[36]。因此,本试验中热应激组黄羽肉鸡黏膜中硫酸乙酯的水平升高,很可能源于热应激诱导的肠道菌群失调,致使异常发酵产生的乙醇增多,进而被肠黏膜细胞吸收并硫酸化。同样的,α-酮戊二酸作为三羧酸循环的重要参与者,它可能通过谷氨酰胺代谢影响机体的热调节能力[37],亦能通过改善肠道的能量水平来缓解肠道损伤[38]。胆绿素是血红素氧合酶1酶促反应产物之一。有研究显示,胆绿素能缓解脂多糖造成的肠道黏膜损伤[39]。热应激后黄羽肉鸡空肠黏膜中胆绿素的水平升高,推测其能适量抵消热应激引发的过量氧化自由基和炎症反应,从而减轻肠上皮细胞损伤,维护屏障功能。由此可见,在热应激状态下,肠道会通过协调机体的一系列代谢适应,以维持全身能量等代谢平衡[40-41]
转录组与代谢组联合分析结果显示,空肠黏膜转录组的差异表达基因与代谢组的差异表达代谢物显著富集于C5-支链二元酸代谢通路。C5-支链二元酸代谢通路主要涉及支链氨基酸的降解代谢,是连接氨基酸代谢与能量代谢的重要桥梁。前人研究表明,热应激会激活与能量代谢相关的氨基酸分解途径[42]。本研究发现,热应激后黄羽肉鸡空肠黏膜中C5-支链二元酸代谢通路被富集,提示热应激能促使支链氨基酸被更多地用于分解供能,以应对能量代谢紊乱。ACOD1是催化衣康酸合成的线粒体酶[43],ACOD1表达上调驱动了顺乌头酸向衣康酸转化,该过程一方面通过分流三羧酸循环碳架而影响线粒体代谢,可能反馈性引起上游代谢物α-酮戊二酸的积累[44];另一方面,代谢流主要导向衣康酸合成,可能导致其旁路产物柠康酸的生成量相应减少[45]。α-酮戊二酸的积累可能有助于维持肠道黏膜在热应激下的能量供应平衡,而衣康酸途径的活化则可能增强抗氧化与抗炎防御,这共同揭示了热应激下黄羽肉鸡肠道通过ACOD1介导的代谢重编,协同调控机体的能量代谢与免疫保护。值得注意的是,本试验采用自由采食模式,而热应激组采食量的下降可能对上述转录组和代谢组结果产生一定影响,未来需要设计采食配对饲喂试验进一步验证。

4 结论

本研究表明,黄羽肉鸡遭受循环热应激后,空肠黏膜中免疫炎症相关基因CCL19、CCL21、IL1R2、ACOD1表达上调,C5-支链二元酸代谢、细胞因子-细胞因子受体相互作用等通路增强,提示肠道免疫与炎症反应被激活;同时,空肠黏膜中1-棕榈酰-2-二十二碳六烯酰-sn-甘油-3-磷酰胆碱、2-油酰-1-棕榈酰-sn-甘油-3-磷酰胆碱、硫酸乙酯、α-酮戊二酸、胆绿素等代谢物的水平升高,造成肠道屏障损伤、能量与氨基酸代谢失衡;相关性进一步分析表明,ACOD1基因可能通过介导C5-支链二元酸代谢通路影响α-酮戊二酸的生成,进而参与维持机体能量与免疫稳态。
[1]
TANG L P, LIU Y L, ZHANG J X, et al. Heat stress in broilers of liver injury effects of heat stress on oxidative stress and autophagy in liver of broilers[J]. Poultry Science, 2022, 101(10):102085.

[2]
HE S P, AROWOLO M A, MEDRANO R F, et al. Impact of heat stress and nutritional interventions on poultry production[J]. World’s Poultry Science Journal, 2018, 74(4):647-664.

[3]
ZHANG Z Y, JIA G Q, ZUO J J, et al. Effects of constant and cyclic heat stress on muscle metabolism and meat quality of broiler breast fillet and thigh meat[J]. Poultry Science, 2012, 91(11):2931-2937.

[4]
VARASTEH S, BRABER S, AKBARI P, et al. Differences in susceptibility to heat stress along the chicken intestine and the protective effects of galacto-oligosaccharides[J]. PLoS One, 2015, 10(9):e0138975.

[5]
LIU L L, REN M Y, REN K, et al. Heat stress impacts on broiler performance:a systematic review and Meta-analysis[J]. Poultry Science, 2020, 99(11):6205-6211.

[6]
HOSSEINDOUST A, KANG H K, KIM J S. Quantifying heat stress;the roles on metabolic status and intestinal integrity in poultry,a review[J]. Domestic Animal Endocrinology, 2022, 81:106745.

[7]
WU Q J, JIAO C, LIU Z H, et al. Effect of glutamine on the growth performance,digestive enzyme activity,absorption function,and mRNA expression of intestinal transporters in heat-stressed chickens[J]. Research in Veterinary Science, 2021, 134:51-57.

[8]
代雪立, 肖敏华, 宋晓琳, 等. 热应激对家禽肠道结构与功能影响的研究进展[J]. 中国家禽, 2010, 32(11):41-43.

DAI X L, XIAO M H, SONG X L, et al. Research advances on effects of heat stress on intestine structure and function of poultry[J]. China Poultry, 2010, 32(11):41-43. (in Chinese)

[9]
KIM D Y, LIN B, KIM J M, et al. Integrated transcriptome analysis for the hepatic and jejunal mucosa tissues of broiler chickens raised under heat stress conditions[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):79-95.

[10]
KIM D, LANGMEAD B, SALZBERG S L. HISAT:a fast spliced aligner with low memory requirements[J]. Nature Methods, 2015, 12(4):357-360.

[11]
LI B, DEWEY C N. RSEM:accurate transcript quantification from RNA-Seq data with or without a reference genome[J]. BMC Bioinformatics, 2011, 12(1):323.

[12]
ROBINSON M D, MCCARTHY D J, SMYTH G K. edgeR:a bioconductor package for differential expression analysis of digital gene expression data[J]. Bioinformatics, 2010, 26(1):139-140.

[13]
SARSOUR A H, KOLTES D A, KIM E J, et al. Effects of a direct fed microbial (DFM) on broiler chickens exposed to acute and chronic cyclic heat stress in two consecutive experiments[J]. Poultry Science, 2022, 101(4):101705.

[14]
钟光, 邵丹, 胡艳, 等. 持续热应激对黄羽肉鸡生长性能、器官指数、血清生化指标和抗氧化功能的影响[J]. 动物营养学报, 2018, 30(11):4425-4432.

ZHONG G, SHAO D, HU Y, et al. Effects of persistent heat stress on growth performance,organ indices,serum biochemical indices and antioxidant function of yellow-feathered broilers[J]. Chinese Journal of Animal Nutrition, 2018, 30(11):4425-4432. (in Chinese)

[15]
NILSSON J A, MOLOKWU M N, OLSSON O. Body temperature regulation in hot environments[J]. PLoS One, 2016, 11(8):e0161481.

[16]
KREGEL K C, WALL P T, GISOLFI C V. Peripheral vascular responses to hyperthermia in the rat[J]. Journal of Applied Physiology, 1988, 64(6):2582-2588.

[17]
LIAN P Q, BRABER S, GARSSEN J, et al. Beyond heat stress:intestinal integrity disruption and mechanism-based intervention strategies[J]. Nutrients, 2020, 12(3):734.

[18]
赵云飞, 金太花, 魏明吉, 等. 热应激影响家禽肠道健康的研究进展[J]. 中国家禽, 2024, 46(12):116-123.

ZHAO Y F, JIN T H, WEI M J, et al. Research progress on effects of heat stress on intestinal health in poultry[J]. China Poultry, 2024, 46(12):116-123. (in Chinese)

[19]
张迦, 王浩轩, 高金稔, 等. 壳寡糖对热应激肉鸡生长性能及肠道消化吸收功能的影响[J]. 动物营养学报, 2025, 37(7):4408-4421.

ZHANG J, WANG H X, GAO J R, et al. Effects of chitosan oligosaccharides on growth performance and intestinal digestion and absorption function of broilers under heat stress[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4408-4421. (in Chinese)

[20]
郭长征, 陈静龙, 雷闯闯, 等. γ-氨基丁酸对热应激黄羽肉鸡生长性能、器官指数、血清生化指标及肠道形态的影响[J]. 动物营养学报, 2024, 36(5):2938-2947.

GUO C Z, CHEN J L, LEI C C, et al. Effects of γ-aminobutyric acid on growth performance,organ indexes,serum biochemical indicators and intestinal morphology of yellow-feathered broiler chickens under heat stress[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):2938-2947. (in Chinese)

[21]
蒋胡艳, 肖福泉, 龚柳菲, 等. 禽致病性大肠杆菌clpV基因缺失对雏鸡气管黏膜细胞因子-细胞因子受体相互作用通路的影响[J]. 安徽农业大学学报, 2023, 50(2):255-260.

JIANG H Y, XIAO F Q, GONG L F, et al. Effect of avian pathogenic Escherichia coli clpV gene deletion on the cytokine-cytokine receptor interaction pathway in chick tracheal mucosa[J]. Journal of Anhui Agricultural University, 2023, 50(2):255-260. (in Chinese)

[22]
ZHANG J F, LI Y, ZHANG A Z, et al. Expression and pathological significance of CC chemokine receptor 7 and its ligands in the airway of asthmatic rats exposed to cigarette smoke[J]. Journal of Thoracic Disease, 2018, 10(9):5459-5467.

[23]
LEÓN B. T cells in allergic asthma:key players beyond the Th2 pathway[J]. Current Allergy and Asthma Reports, 2017, 17(7):43.

[24]
YAN Y, CHEN R F, WANG X, et al. CCL19 and CCR 7 expression,signaling pathways,and adjuvant functions in viral infection and prevention[J]. Frontiers in Cell and Developmental Biology, 2019, 7:212.

[25]
KOCHUMON S, AL-RASHED F, ABU-FARHA M, et al. Adipose tissue expression of CCL19 chemokine is positively associated with insulin resistance[J]. Diabetes Metabolism:Research and Reviews, 2019, 35(2):e3087.

[26]
米萌萌. 大豆抗原诱导仔猪肠道免疫反应的个体差异及其机制研究[D]. 博士学位论文. 长春: 吉林农业大学, 2024.

MI M M. Individual differences in intestinal immune responses induced by soybean antigen and its mechanism in piglets[D]. Ph.D.Thesis. Changchun: Jilin Agricultural University, 2024. (in Chinese)

[27]
YAMASHITA N, TASHIMO H, MATSUO Y, et al. Role of CCL21 and CCL19 in allergic inflammation in the ovalbumin-specific murine asthmatic model[J]. The Journal of Allergy and Clinical Immunology, 2006, 117(5):1040-1046.

[28]
ZHANG H, ZHANG X, DING X, et al. Effect of secondary lymphoid tissue chemokine suppression on experimental ulcerative colitis in mice[J]. Genetics and Molecular Research, 2014, 13(2):3337-3345.

[29]
卢慧敏, 蒋敬庭, 卢斌峰. IL-1R2生物学功能及作用机制研究进展[J]. 现代免疫学, 2019, 39(2):155-158.

LU H M, JIANG J T, LU B F. Research progress on the biological functions and mechanisms of IL-1R2[J]. Current Immunology, 2019, 39(2):155-158. (in Chinese)

[30]
陈静, 韦小白, 卫海民. 黄芩苷通过抑制IL1R2表达对A549肺癌细胞增殖、迁移及凋亡的作用及机制研究[J]. 临床肺科杂志, 2024, 29(7):1042-1048.

CHEN J, WEI X B, WEI H M, et al. Effect and mechanism of baicalin on proliferation, migration and apoptosis of A549 lung cancer cells by inhibiting IL1R2 expression[J]. Journal of Clinical Pulmonary Medicine, 2024, 29(7):1042-1048. (in Chinese)

[31]
WU R L, CHEN F, WANG N, et al. ACOD1 in immunometabolism and disease[J]. Cellular & Molecular Immunology, 2020, 17(8):822-833.

[32]
HOLMSEN H, HINDENES J O, FUKAMI M. Glycerophospholipid metabolism:back to the future[J]. Thrombosis Research, 1992, 67(3):313-323.

[33]
SAITO R D F, ANDRADE L N D S, BUSTOS S O, et al. Phosphatidylcholine-derived lipid mediators: the crosstalk between cancer cells and immune cells[J]. Frontiers in Immunology, 2022, 13:768606-768629.

[34]
段玉婷. 基于转录组学和代谢组学联合分析慢性和急性热应激对花斑裸鲤肝脏的影响[D]. 硕士学位论文. 重庆: 西南大学, 2025.

DUAN Y T. Combined analysis of the effects of chronic and acute heat stress on the liver of Gymnocypris eckloni based on transcriptome and metabolome[D]. Master’s Thesis. Chongqing: Southwest University, 2025. (in Chinese)

[35]
SHI D Y, BAI L, QU Q, et al. Impact of gut microbiota structure in heat-stressed broilers[J]. Poultry Science, 2019, 98(6):2405-2413.

[36]
OKE O E, ONI A I, AKOSILE O A, et al. Heat stress and gut microbiome dynamics in poultry: interplay,consequences,and mitigation strategies[J/OL]. Animal Research and One Health,2025-11-08.https://doi.org/10.1002/aro2.70046.

[37]
HE L Q, WU J, TANG W J, et al. Prevention of oxidative stress by α-ketoglutarate via activation of CAR signaling and modulation of the expression of key antioxidant-associated targets in vivo and in vitro[J]. Journal of Agricultural and Food Chemistry, 2018, 66(43):11273-11283.

[38]
GUO S S, DUAN R, WANG L, et al. Dietary α-ketoglutarate supplementation improves hepatic and intestinal energy status and anti-oxidative capacity of Cherry Valley ducks[J]. Animal Science Journal, 2017, 88(11):1753-1762.

[39]
CERAN C, SÖNMEZ K, TÜRKYLLMAZ Z, et al. Effect of bilirubin in ischemia/reperfusion injury on rat small intestine[J]. Journal of Pediatric Surgery, 2001, 36(12):1764-1767.

[40]
WANG Z X, SHAO D, WU S, et al. Heat stress-induced intestinal barrier damage and dimethylglycine alleviates via improving the metabolism function of microbiota gut brain axis[J]. Ecotoxicology and Environmental Safety, 2022, 244:114053.

[41]
PEARCE S C, MANIM V, BODDICKER R L, et al. Heat stress reduces barrier function and alters intestinal metabolism in growing pigs[J]. Journal of Animal Science, 90(Suppl.4):257-259.

[42]
MUJAHID A, SATO K, AKIBA Y, et al. Acute heat stress stimulates mitochondrial superoxide production in broiler skeletal muscle,possibly via downregulation of uncoupling protein content[J]. Poultry Science, 2006, 85(7):1259-1265.

[43]
WU R L, LIU J, TANG D L, et al. The dual role of ACOD1 in inflammation[J]. The Journal of Immunology, 2023, 211(4):518-526.

[44]
O’NEILL L A J. KISHTON R J, RATHMELL J. A guide to immunometabolism for immunologists[J]. Nature Reviews Immunology, 2016, 16(9):553-565.

[45]
LAMPROPOULOU V, SERGUSHICHEV A, BAMBOUSKOVA M, et al. Itaconate links inhibition of succinate dehydrogenase with macrophage metabolic remodeling and regulation of inflammation[J]. Cell Metabolism, 2016, 24(1):158-166.

Outlines

/