RESEARCH PAPER

Rosemary Extract Alleviates Oxidative Stress and Improves Lactation Performance via Regulating Rumen Microbe-Metabolite Interaction in Plateau Periparturient Dairy Cows

  • YANG Yan , 1, 2 ,
  • FAN Xueni 1, 2 ,
  • WEN Dongxu 1 ,
  • SILANG Wangmu 1 ,
  • SUOLANG Quji 1 ,
  • LI Bin , 1, *
Expand
  • 1 Institute of Animal Husbandry and Veterinary Medicine, Tibet Autonomous Region Academy of Agricultural and Animal Husbandry Sciences, Lhasa 850000, China
  • 2 School of Public Health, Lanzhou University, Lanzhou 730000, China
*professor, E-mail:

Received date: 2025-12-24

  Online published: 2026-08-13

Abstract

This experiment was conducted to investigate the regulatory effects of rosemary extract on oxidative stress and lactation performance of plateau periparturient dairy cows. A total of 20 periparturient Holstein cows with similar previous lactation yield [(26.10±1.32) kg/d] and body weight [(550.3±13.9) kg] were selected and randomly divided into 2 groups with 10 replicates per group. Cows in the control group were fed a basal diet, while those in the rosemary group were orally administered with 20 g/(head·d) rosemary extract on the basis of the basal diet. The rosemary extract intervention period lasted 45 d, including a 15-d pre-trial period and a 30-d formal trial period (from 15 d prepartum to 15 d postpartum). After the intervention period, serum antioxidant indices, rumen volatile fatty acid contents, rumen microbial community structure and metabolite differences were determined, and lactation performance from 1 to 6 months postpartum was measured. The results showed as follows: 1) compared with the control group, the average milk yield of the rosemary group was significantly increased at the 2nd, 3rd and 5th months postpartum and during the overall 1 to 6 months postpartum (P<0.05). 2) Compared with the control group, the serum malondialdehyde content of the rosemary group was significantly decreased (P<0.05), while serum glutathione peroxidase activity was significantly increased (P<0.05). 3) Compared with the control group, the contents of acetate, propionate, butyrate, isovalerate and valerate in rumen fluid of the rosemary group were significantly increased (P<0.05). 4) Compared with the control group, the Chao1, Shannon and Simpson indexes of rumen microbiota in the rosemary group were significantly increased (P<0.05); the relative abundances of Bacteroidota, Anaerovibrio and Succiniclasticum were significantly increased (P<0.05), while the relative abundances of Proteobacteria, unidentified_Enterobacteriaceae and Pseudomonas were significantly decreased (P<0.05). 5) Compared with the control group, the contents of oleanolic acid, betulinic acid and lutein in rumen fluid of the rosemary group were significantly up-regulated (P<0.05). In conclusion, oral administration of 20 g/(head·d) rosemary extract during the periparturient period could enhance rumen volatile fatty acid content and microbial diversity, enrich beneficial microbiota and antioxidant metabolites, strengthen antioxidant capacity, and optimize lactation performance in plateau dairy cows.

Cite this article

YANG Yan , FAN Xueni , WEN Dongxu , SILANG Wangmu , SUOLANG Quji , LI Bin . Rosemary Extract Alleviates Oxidative Stress and Improves Lactation Performance via Regulating Rumen Microbe-Metabolite Interaction in Plateau Periparturient Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 5926 -5939 . DOI: 10.12418/CJAN2026.475

围产期是奶牛生产周期中的关键过渡阶段,也是代谢性和生产性疾病的高发期。该阶段奶牛机体抗氧化能力和免疫力下降,易诱发炎症反应[1-3]。高原地区的低氧环境会进一步加剧氧化应激,而围产期奶牛本身受能量负平衡、免疫调节紊乱影响,也处于氧化应激高发状态[4]。因此,高原围产期奶牛实际上承受着“环境低氧”与“生理过渡”带来的双重氧化应激压力,这不仅严重损害其健康与泌乳性能,也阻碍了高原畜牧业的可持续发展。
迷迭香(Rosmarinus officinalis L.)是唇形科多年生常绿芳香灌木,富含酚类、萜类、黄酮类、有机酸等活性成分[5],并被证实在动物体内具有较强的抗菌、抗炎、抗氧化及调节肠道菌群的作用[6]。Liu等[7]研究表明,饲粮添加迷迭香提取物可降低肉鸡肠道部分致病菌丰度,提高其抗氧化及免疫能力。近年来,迷迭香在反刍动物养殖中的应用逐步开展,有研究报道其可改变瘤胃发酵模式,提高奶牛瘤胃中丙酸产生量,改善能量供应[8]。上述作用提示,迷迭香对动物健康与代谢的调控很可能与其干预消化道微生物生态系统密切相关。对于反刍动物而言,瘤胃是这一系统的核心。
瘤胃作为一个复杂的微生物生态系统,其菌群结构及代谢活性与宿主健康状态动态关联,是营养干预的关键靶点[9]。研究表明,瘤胃微生物及其代谢产物与机体氧化应激及健康状态密切相关[10]。瘤胃微生物发酵产生的挥发性脂肪酸(VFA)除作为能量底物外,其中丙酸、丁酸等组分还可通过调控核因子-κB(NF-κB)信号通路,发挥抗炎与间接抗氧化作用[11-12]。基于此,能够定向调控瘤胃微生物以促进有益VFA生成的营养策略受到广泛关注。已有研究证实,植物多酚和黄酮类物质可通过优化菌群结构,降低瘤胃内毒素等有害代谢产物的积累,从而缓解全身性炎症与氧化应激[13]。迷迭香提取物中富含多种酚类与萜类活性物质,其中鼠尾草酸已被证实可重塑小鼠肠道微生物-代谢轴,改善机体健康状态[14]。然而,迷迭香提取物能否通过调控微生物-代谢轴帮助高原围产期奶牛抵抗双重应激仍未可知。因此,本研究以高原围产期荷斯坦奶牛为研究对象,为其补充迷迭香提取物,采集瘤胃液、乳汁及血液样本,检测血清抗氧化指标、泌乳量与乳成分,并分析瘤胃微生物与代谢物变化特征,旨在探究迷迭香提取物对高原围产期奶牛氧化应激及泌乳性能的调控作用。

1 材料与方法

1.1 试验材料

本试验所用迷迭香提取物主要活性成分为迷迭香酸(1.72%)、琥珀酸(1.01%)、熊果酸(0.50%)及白桦脂酸(0.01%)等。

1.2 试验设计与饲养管理

本研究严格遵循国际实验动物伦理规范,所有试验方案均通过兰州大学公共卫生学院医学伦理委员会审批,批准号为IRB23050101。采用完全随机区组设计,选取上一胎泌乳量[(26.10±1.32) kg/d]和体重[(550.3±13.9) kg]相近的围产期荷斯坦奶牛20头,随机分为2组,每组10头。对照组饲喂基础饲粮,迷迭香组在饲喂基础饲粮的基础上,晨饲前经口灌服20 g/(头·d)迷迭香提取物(溶于200 mL水中)。迷迭香提取物干预期45 d,其中预试期15 d,正试期30 d(产前15 d至产后15 d)。基础饲粮组成及营养水平见表1。试验期间,所有奶牛统一饲养于自然通风双列对头式单栏牛舍,基础饲粮以全混合日粮(TMR)形式饲喂,每日07:00与18:00各饲喂1次,自由采食和饮水。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)%

项目 Items 含量 Content
原料 Ingredients
精料 Concentrate1) 26.0
苜蓿干草 Alfalfa hay 21.5
燕麦干草 Oat hay 30.4
玉米青贮 Corn silage 19.1
碳酸钙 CaCO3 0.5
碳酸氢钠 NaHCO3 0.5
食盐 NaCl 1.0
预混料 Premix2) 1.0
合计 Total 100.0
营养水平 Nutrient levels3)
消化能 DE/(MJ/kg) 13.2
干物质(饲喂基础) DM (as-fed basis) 69.9
粗蛋白质 CP 14.8
粗纤维 CF 16.7
中性洗涤纤维 NDF 28.6
酸性洗涤纤维 ADF 20.4
粗灰分 Ash 6.5
粗脂肪 EE 2.4
钙 Ca 0.46
磷 P 0.26

1)每千克精料含有 One kilogram of the concentrate contained the following:玉米粒 maize grain 610 g,豆粕 soybean meal 70 g,油菜籽粕 canola meal 50 g,载体/填充物(主要为麸皮) carrier/filler (mainly wheat bran) 270 g。

2)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:Fe 41 mg,I 1.2 mg,Co 0.5 mg,Mn 98 mg,Ca 16 mg,P 5 mg,Se 0.9 mg,Zn 187 mg,Cu 36 mg,VA 1 500 IU,VD 550 IU,VE 10 IU。

3)消化能为依据《中国饲料成分及营养价值表(2024年第35版)》所得计算值,其余为实测值。DE was a calculated value according to Tables of Feed Composition and Nutritive Values in China (35th edition, 2024), while the others were measured values.

1.3 样品采集与指标测定

1.3.1 饲粮养分含量及干物质采食量

从预试期开始至产后第6个月,每日记录奶牛的采食量并采集饲粮样品。样品先置于65 ℃通风烘箱中干燥48 h,随后研磨并过1 mm筛;准确称取研磨后的样品,在105 ℃条件下烘至恒重,测定干物质含量,计算每日干物质采食量。剩余样品在-20 ℃下保存,混合均匀后分装,用于后续化学分析。饲粮中干物质含量参照AOAC 934.01方法测定,粗灰分含量采用550 ℃马弗炉燃烧法(AOAC 942.05)测定,粗蛋白质含量采用凯氏定氮法(AOAC 984.13)测定,粗脂肪含量采用索氏抽提法(AOAC 920.39)测定,粗纤维含量采用酸碱消煮法(AOAC 978.10)测定,钙含量采用乙二胺四乙酸二钠络合滴定法(GB/T 6436—2018)测定,磷含量采用钒酸铵钼酸盐比色法(GB/T 6437—2018)测定,酸性洗涤纤维与中性洗涤纤维含量参照Van Soest等[15]的方法测定。

1.3.2 泌乳量及乳成分

产后第1~6个月,每日记录每头奶牛的泌乳量。自试验结束当日起,每月22日至24日连续3 d采集乳样,每日07:00与18:00各取样1次,持续监测6个月;采用MilkoScanTM FT1 傅里叶变换中红外多功能乳品分析仪(FOSS,丹麦)测定乳脂及乳蛋白含量,乳成分数据以6个月测定结果平均值表示。

1.3.3 血清抗氧化指标

迷迭香提取物干预期结束次日晨饲前,使用无抗凝剂真空采血管,通过颈静脉穿刺采集血样。血样于4 ℃静置过夜后,在4 ℃、3 000×g条件下离心10 min,分离血清,分装后置于-20 ℃保存待测。采用北京索莱宝科技有限公司生产的试剂盒测定血清超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性及丙二醛(MDA)含量,操作步骤严格遵循试剂盒说明书。

1.3.4 新生犊牛体尺指标

犊牛出生后24 h内,记录性别和出生体重,并测定各项体尺指标。所有体尺测量均在犊牛后肢垂直悬吊状态(模拟自然分娩姿势)下进行,各指标测定方法如下:体高,前肢大腿后缘至地面的垂直距离;体深,最后一根肋骨处腹部下缘的深度;胸宽,肩胛后方胸部最宽部位的水平距离;胸围,肩胛后缘处躯干的周径;体斜长,肩端至坐骨结节外缘的直线距离;管围,左前肢管部上1/3处的最小周径;腹围,躯体腹背方向的最大周径。

1.3.5 瘤胃液VFA含量

迷迭香提取物干预期结束次日晨饲前,使用无菌胃管取样器(武汉科瑞博科技有限公司)采集瘤胃液。样品经4层纱布过滤后,立即分装至2 mL无菌冷冻管中,液氮速冻后转移至-80 ℃冰箱保存,全程操作遵循无菌规范。
参考丁学智等[16]的方法测定瘤胃液VFA含量。瘤胃液样品解冻后,于4 ℃、15 000×g条件下离心15 min;取1 mL上清液转移至1.5 mL离心管中,加入0.2 mL含有内标物的25%偏磷酸溶液,充分混匀后冰浴静置30 min,再次于4 ℃、15 000×g条件下离心15 min;取上清液采用高性能气相色谱仪(Agilent,美国)进行检测。色谱条件:HP-INNOWax色谱柱(30 m×0.25 mm);程序升温,初始60 ℃,以10 ℃/min升至120 ℃保持2 min,再以15 ℃/min升至180 ℃保持5 min;进样口温度250 ℃,氢火焰离子化检测器温度250 ℃;载气为高纯氮气,分流比40∶1。

1.3.6 瘤胃微生物多样性及群落组成分析

采用十六烷基三甲基溴化铵(CTAB)法提取瘤胃液微生物总DNA,通过琼脂糖凝胶电泳评估DNA纯度与完整性;将合格DNA样本稀释至1 ng/μL工作浓度作为PCR模板,使用515F(5'-GTGCCAGCMGCCGCGGTAA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')引物对16S rRNA基因V4高变区进行扩增[17]。将各样品PCR产物按等摩尔浓度混合后,进行2%琼脂糖凝胶电泳分离,使用凝胶回收试剂盒(Qiagen,德国)切胶回收目标条带;采用TruSeq DNA PCR-Free建库试剂盒(Illumina,美国)构建测序文库,经Qubit与实时荧光定量PCR定量后,合格文库于NovaSeq 6000平台进行测序。下机原始数据使用Fastp进行质控过滤,获得高质量序列;通过FLASH对双端序列进行拼接,生成有效标签(clean tags);进一步剔除嵌合体序列,并将有效序列与数据库进行比对注释,用于后续分析。本试验各样品平均获得95 250条有效序列。

1.3.7 瘤胃液代谢组学分析

采用液相色谱-串联质谱(LC-MS/MS)技术对瘤胃液中代谢物进行鉴定。样品从-80 ℃取出后置于冰上解冻(后续所有操作均在冰上进行),取200 μL解冻样品,加入等体积含内标的20%乙腈-甲醇溶液,涡旋混匀;混合物于12 000×g、4 ℃离心10 min,取上清液浓缩至干燥,残留物用100 μL 70%甲醇溶液复溶,冰水浴超声处理10 min后,于4 ℃、12 000×g离心3 min,取80 μL上清液上机检测,色谱条件参照Yun等[18]。原始数据经XCMS程序进行峰提取、对齐与保留时间校正,采用支持向量回归(SVR)算法校正峰面积,并剔除组内缺失值>50%的离子峰;利用MetDNA算法(v1.0)及自建二级质谱数据库进行代谢物结构鉴定。显著差异代谢物通过KEGG和HMDB数据库进行通路注释与生物学功能解析。

1.4 数据统计分析

采用R(v4.3.3)和SPSS 26.0软件对试验数据进行统计分析。正态分布数据采用独立样本t检验,非正态分布数据采用Wilcoxon秩和检验,结果用平均值和均值标准误(SEM)表示,以P<0.05为差异显著判定标准。
利用Uparse算法,对瘤胃微生物有效序列在97%序列相似度水平下聚类生成操作分类单元(OTU)[19];基于SILVA 138.1数据库的SSU rRNA数据,通过Mothur(v1.48)完成OTU物种注释。利用R(v4.3.3)phyloseq与vegan包计算α多样性指数(Chao1、Shannon、Simpson指数);并基于加权Unifrac距离进行主坐标分析(PCoA);通过Z-score对数据进行标准化后,利用R(v4.3.3)pheatmap包绘制聚类热图。
对瘤胃代谢物进行正交偏最小二乘判别分析(OPLS-DA)。以变量投影重要性(VIP)>1、t检验P<0.05且|log2差异倍数(FC)|>0[20]为标准筛选差异代谢物,并利用R(v4.3.3)ggplot2包绘制火山图进行结果可视化。对瘤胃差异菌属与瘤胃液VFA及差异代谢物进行Spearman相关性分析,并利用R(v4.3.3)corrplot包绘制相关性热图。以P<0.05为显著相关判定标准。

2 结果与分析

2.1 迷迭香提取物对奶牛干物质采食量、泌乳性能、血清抗氧化指标及所产新生犊牛体尺指标的影响

表2可知,与对照组相比,迷迭香组奶牛干物质采食量无显著变化(P>0.05),但产后第2、3、5个月及第1~6个月的平均泌乳量均显著提高(P<0.05)。尽管2组间产后第1、4、6个月的平均泌乳量无显著差异(P>0.05),但迷迭香组在数值上仍高于对照组,乳脂、乳蛋白含量及乳脂与乳蛋白比值也呈现相同趋势。
表2 迷迭香提取物对奶牛干物质采食量和泌乳性能的影响

Table 2 Effects of rosemary extract on dry matter intake and lactation performance of dairy cows

项目
Items
对照组
Control group
迷迭香组
Rosemary group
均值标准误
SEM
P
P-value
干物质采食量 DMI/(kg/d) 14.88 16.72 0.547 1.000
平均泌乳量 Average milk yield/(kg/d)
产后第1个月 Month 1 postpartum 17.16 22.81 2.078 0.092
产后第2个月 Month 2 postpartum 16.06 20.78 0.850 0.010
产后第3个月 Month 3 postpartum 16.16 21.96 1.402 0.040
产后第4个月 Month 4 postpartum 15.30 18.92 1.212 0.075
产后第5个月 Month 5 postpartum 9.45 11.55 0.343 0.002
产后第6个月 Month 6 postpartum 10.16 12.40 0.744 0.088
产后第1~6个月 Months 1 to 6 postpartum 14.03 18.07 1.271 0.030
乳成分 Milk composition
乳脂 Milk fat/% 4.01 4.38 0.215 0.202
乳蛋白 Milk protein/% 3.13 3.43 0.093 0.079
乳脂/乳蛋白 Milk fat/milk protein 1.27 1.35 0.071 0.472
表3可知,与对照组相比,迷迭香组血清MDA含量显著降低(P<0.05),血清GSH-Px活性显著提高(P<0.05),血清SOD活性无显著变化(P>0.05)。
表3 迷迭香提取物对奶牛血清抗氧化指标的影响

Table 3 Effects of rosemary extract on serum antioxidant indices of dairy cows

项目
Items
对照组
Control group
迷迭香组
Rosemary group
均值标准误
SEM
P
P-value
超氧化物歧化酶 SOD/(U/mL) 45.22 72.27 5.584 0.313
丙二醛 MDA/(mmol/mL) 2.98 1.69 0.262 0.009
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 46.37 72.27 5.584 0.011
表4可知,2组奶牛所产新生犊牛的各项体尺指标均无显著差异(P>0.05)。
表4 围产期奶牛灌服迷迭香提取物对其所产新生犊牛体尺指标的影响

Table 4 Effects of rosemary extract gavage in periparturient dairy cows on body measurements of their newborn calves

项目
Items
对照组
Control group
迷迭香组
Rosemary group
均值标准误
SEM
P
P-value
体高 Body height/cm 78.90 77.78 0.775 0.089
体深 Body depth/cm 30.98 30.20 0.629 0.382
体斜长 Body obliquely length/cm 67.80 68.30 1.525 0.832
管围 Tube circumference/cm 10.30 10.95 0.281 0.121
胸宽 Chest width/cm 9.75 10.35 0.323 0.915
胸围 Chest circumference/cm 77.20 77.20 0.934 1.000
腹围 Abdominal circumference/cm 75.78 74.70 1.218 0.248
体重 Body weight/kg 32.97 34.80 1.355 0.552

2.2 迷迭香提取物对奶牛瘤胃液VFA含量的影响

表5可知,与对照组相比,迷迭香组瘤胃液乙酸、丙酸、丁酸、异戊酸和戊酸含量显著提高(P<0.05)。
表5 迷迭香提取物对奶牛瘤胃液VFA含量的影响

Table 5 Effects of rosemary extract on VFA contents in ruminal fluid of dairy cowsmmol/L

项目
Items
对照组
Control group
迷迭香组
Rosemary group
均值标准误
SEM
P
P-value
乙酸 Acetate 40.85 53.20 3.317 0.029
丙酸 Propionate 28.07 37.64 3.223 0.024
异丁酸 Isobutyrate 14.71 18.71 2.527 0.258
丁酸 Butyrate 37.08 47.99 2.513 0.013
异戊酸 Isovalerate 29.05 40.10 4.385 0.035
戊酸 Valerate 12.96 18.58 1.533 0.007

2.3 迷迭香提取物对奶牛瘤胃微生物群落的影响

2.3.1 瘤胃微生物群落多样性
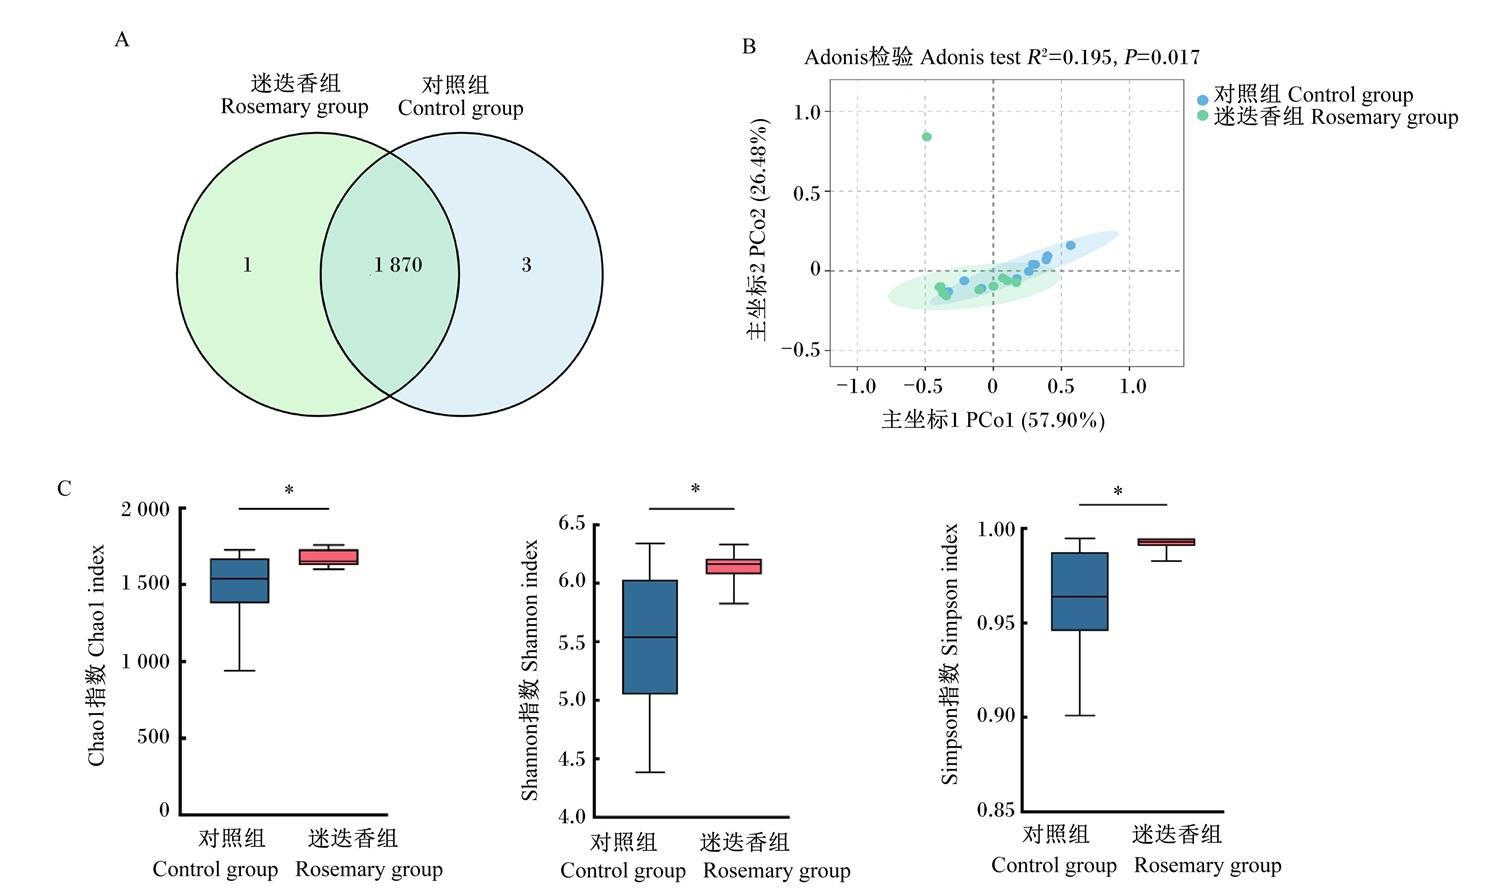
基于16S rRNA扩增子测序,在20个样品中共鉴定出6 855个高质量OTU。由图1可知,韦恩图(图1-A)分析结果显示,2组共有OTU数量为1 870个,对照组独有OTU数量为3个,迷迭香组独有OTU数量为1个。α多样性分析(图1-C)结果显示,相较于对照组,迷迭香组瘤胃微生物Chao1、Shannon和Simpson指数均显著提高(P<0.05)。基于加权UniFrac距离的PCoA(图1-B)结果表明,迷迭香组与对照组的瘤胃微生物菌群结构存在显著差异(P<0.05)。
图1 瘤胃微生物群落多样性分析

A:韦恩图;B:主坐标分析;C:α多样性分析。A: Venn diagram; B: PCoA; C: α diversity analysis.

*表示P<0.05,**表示P<0.01。图2图3图5同。* indicated P<0.05, ** indicated P<0.01. The same as Fig.2, Fig.3 and Fig.5.

Fig.1 Analysis of rumen microbial diversity

2.3.2 瘤胃微生物群落组成及差异分析

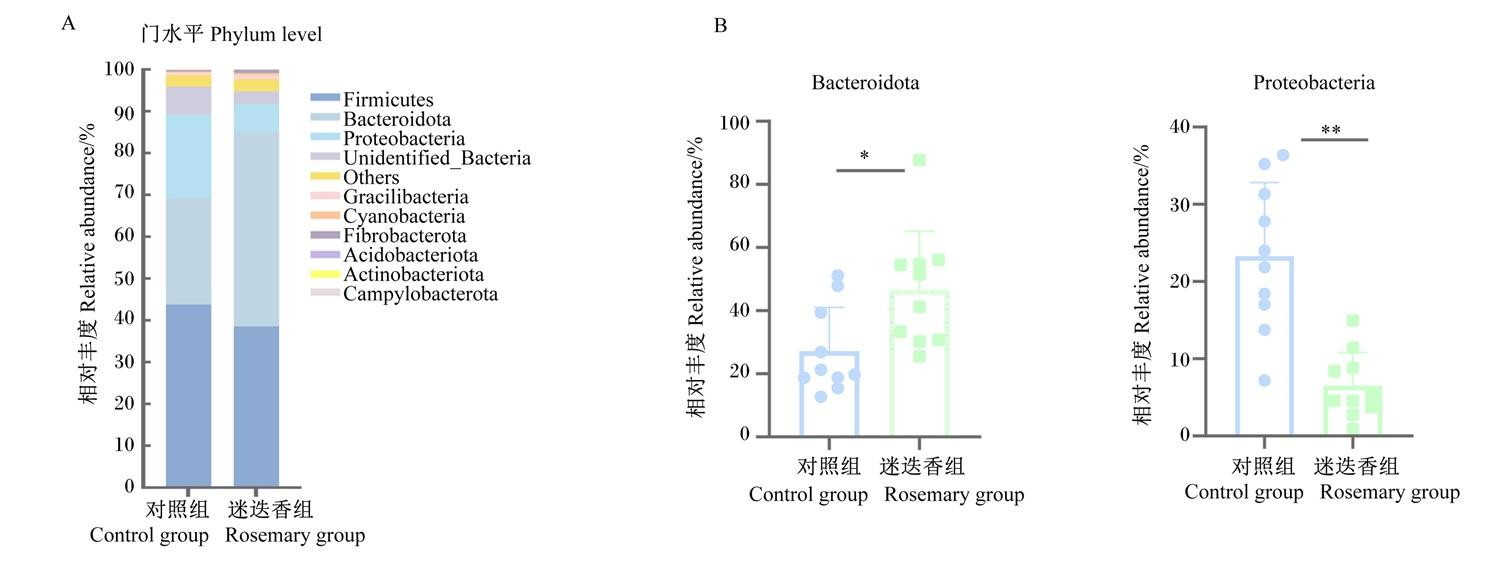
门水平瘤胃微生物群落组成(图2-A)显示,2组瘤胃微生物中厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、变形菌门(Proteobacteria)和未鉴定细菌(unidentified_Bacteria)为优势菌门。由图2-B可知,与对照组相比,迷迭香组拟杆菌门相对丰度显著提高(P<0.05),变形菌门相对丰度显著降低(P<0.05)。
图2 门水平瘤胃微生物群落组成及差异分析

A:门水平瘤胃微生物群落组成;B:瘤胃微生物群落差异菌门分析。A: composition of rumen microbial community at phylum level; B: analysis of differential bacterial phyla in rumen microbial community.

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Unidentified_Bacteria:未鉴定细菌;Gracilibacteria:芽孢杆菌门;Cyanobacteria:蓝细菌门;Fibrobacterota:纤维杆菌门;Acidobacteriota:酸杆菌门;Actinobacteria:放线菌门;Campylobacteria:弯曲菌门;Others:其他。

Fig.2 Composition and differential analysis of rumen microbial community at phylum level

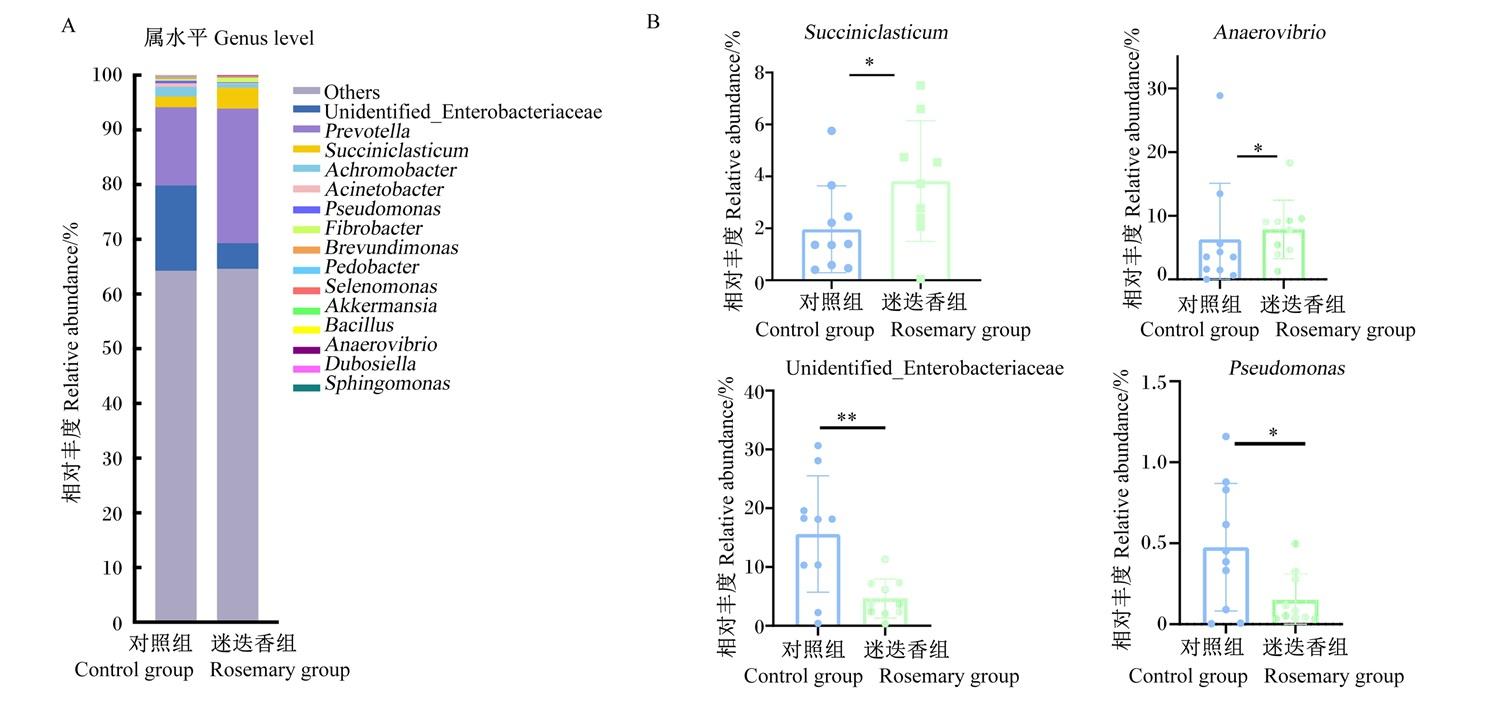
属水平瘤胃微生物群落组成(图3-A)显示,2组瘤胃微生物中普雷沃氏菌属(Prevotella)、未鉴定肠杆菌科(unidentified_Enterobacteriaceae)及解琥珀酸菌属(Succiniclasticum)为优势菌属。由图3-B可知,与对照组相比,迷迭香组厌氧弧菌属(Anaerovibrio)和解琥珀酸菌属相对丰度显著提高(P<0.05),未鉴定肠杆菌科和假单胞菌属(Pseudomonas)相对丰度显著降低(P<0.05)。
图3 属水平瘤胃微生物群落组成及差异分析

A:属水平瘤胃微生物群落组成;B:瘤胃微生物群落差异菌属分析。A: composition of rumen microbial community at genus level; B: analysis of differential bacterial genera in rumen microbial community.

Unidentified_Enterobacteriaceae:未鉴定肠杆菌科;Prevotella:普雷沃氏菌属;Succiniclasticum:解琥珀酸菌属;Achromobacter:无色杆菌属;Acinetobacter:不动杆菌属;Pseudomonas:假单胞菌属;Fibrobacter:纤维杆菌属;Brevundimonas:短波单胞菌属;Pedobacter:土地杆菌属;Selenomonas:月形单胞菌属;Akkermansia:阿克曼氏菌属;Bacillus:芽孢杆菌属;Anaerovibrio:厌氧弧菌属;Dubosiella:杜波氏菌属;Sphingomonas:鞘氨醇单胞菌属;Others:其他。

Fig.3 Composition and differential analysis of rumen microbial community at genus level

2.4 瘤胃差异菌属与VFA的相关性分析

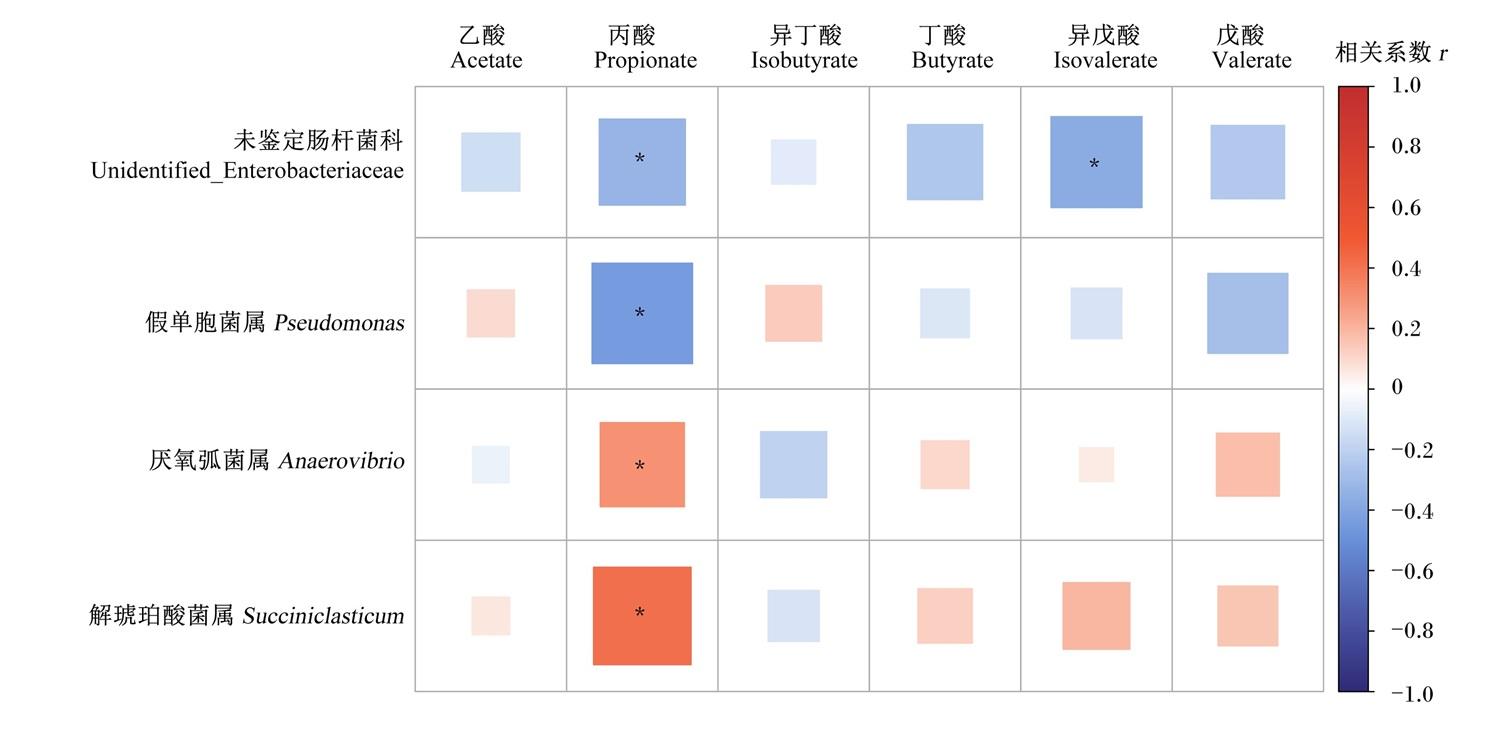
采用Spearman相关性分析探究瘤胃差异菌属(未鉴定肠杆菌科、假单胞菌属、厌氧弧菌属、解琥珀酸菌属)相对丰度与瘤胃液中6种VFA(乙酸、丙酸、异丁酸、丁酸、异戊酸、戊酸)含量之间的相关关系,结果(图4)显示,丙酸含量与未鉴定肠杆菌科、假单胞菌属相对丰度呈显著负相关(P<0.05),与厌氧弧菌属、解琥珀酸菌属相对丰度呈显著正相关(P<0.05);丁酸含量与未鉴定肠杆菌科、假单胞菌属相对丰度呈负相关(P>0.05);异戊酸含量与未鉴定肠杆菌科相对丰度呈显著负相关(P<0.05);戊酸含量与未鉴定肠杆菌科、假单胞菌属相对丰度呈负相关(P>0.05),与厌氧弧菌属和解琥珀酸菌属相对丰度呈正相关(P>0.05)。
图4 瘤胃差异菌属与VFA相关性热图

红色表示正相关,蓝色表示负相关,颜色越深,相关性越强。*表示显著相关(P<0.05)。图7同。

Fig.4 Correlation heatmap between differential ruminal bacterial genera and VFA

Red indicated positive correlation and blue indicated negative correlation; darker color represented stronger correlation. * indicated significant correlation (P<0.05). The same as Fig.7.

2.5 迷迭香提取物对奶牛瘤胃液代谢组的影响

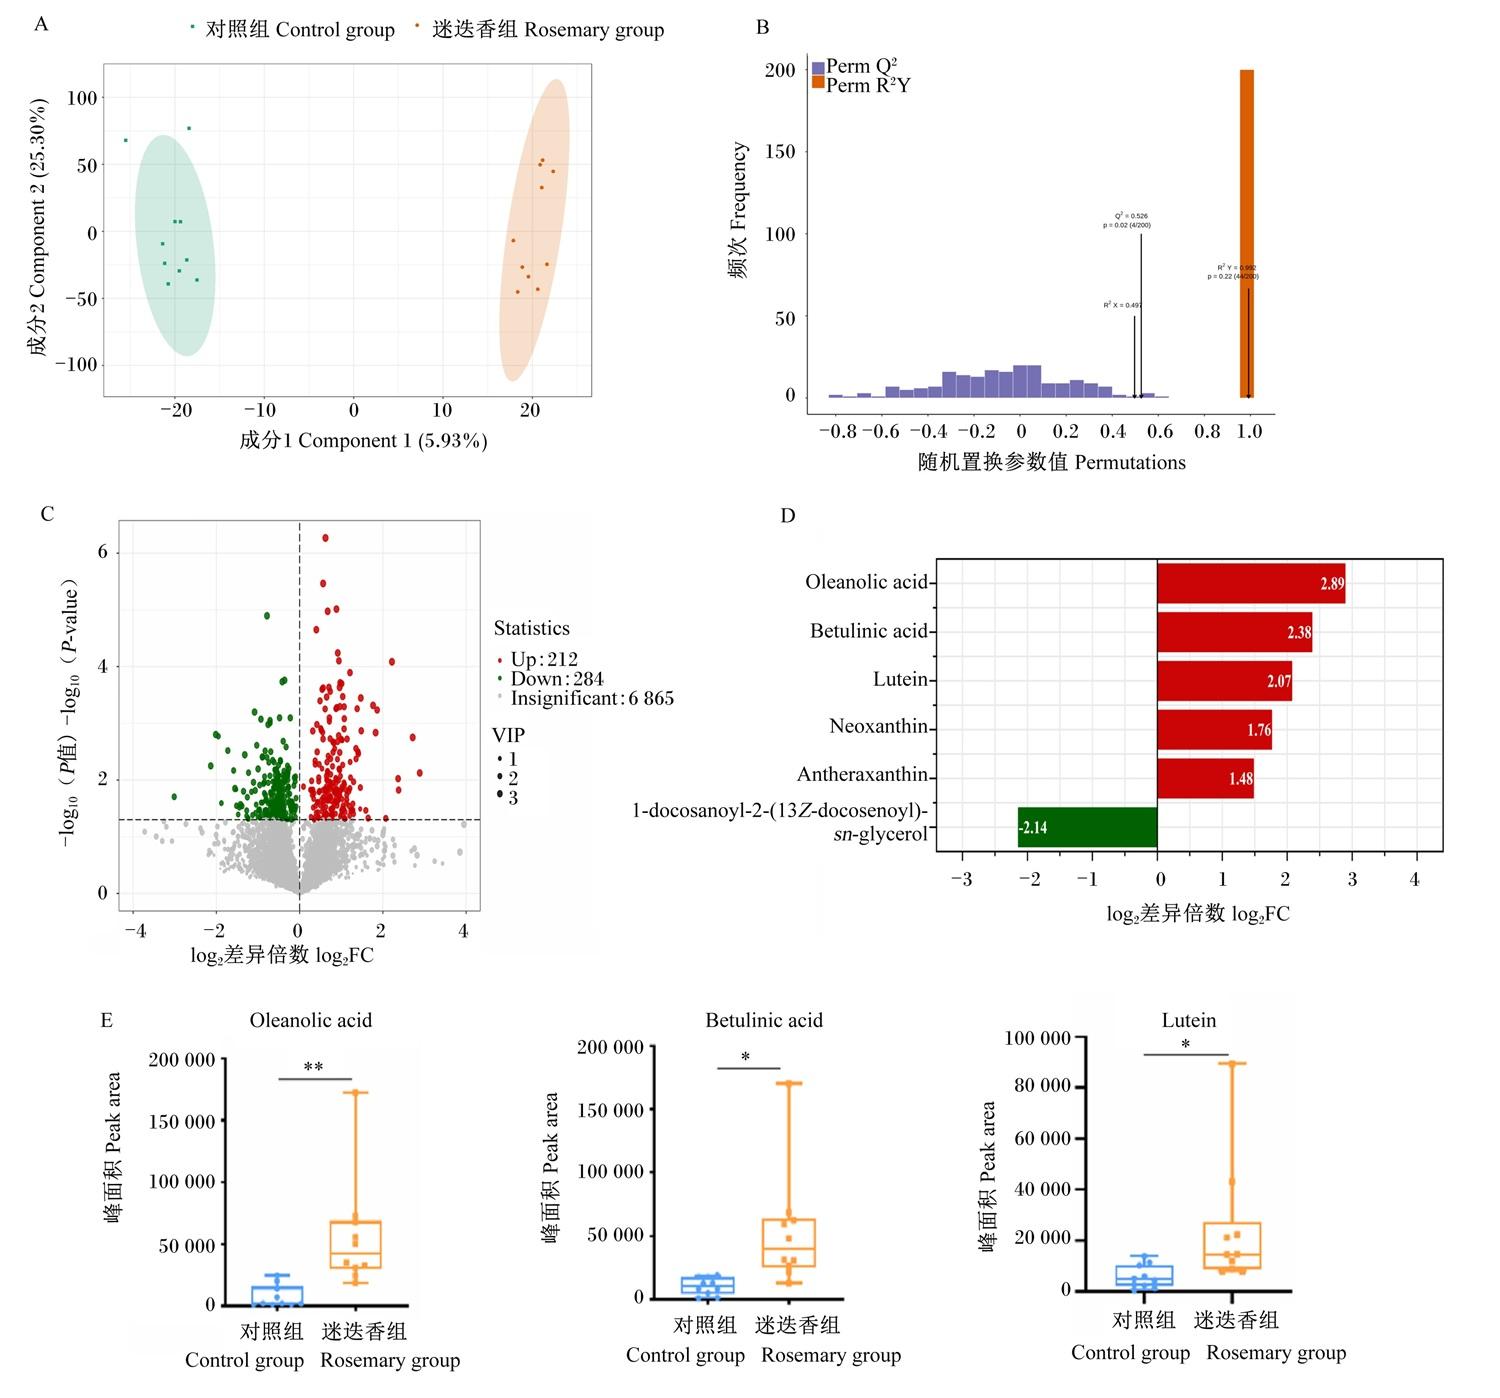
OPLS-DA得分图(图5-A)显示2组瘤胃液代谢物谱呈明显分离,置换检验(图5-B)结果表明OPLS-DA模型无过拟合、稳定性良好。由图5-C可知,与对照组相比,迷迭香组共筛选出496个差异代谢物,其中212个显著上调、284个显著下调(|log2FC|>0且P<0.05)。差异代谢物log2FC分布柱状图(图5-D)显示,与对照组相比,迷迭香组齐墩果酸(oleanolic acid)、白桦脂酸(betulinic acid)、叶黄素(lutein)、新黄质(neoxanthin)和花药黄质(antheraxanthin)含量上调,山嵛酰-2-(13Z-芥酰)-sn-甘油[1-docosanoyl-2-(13Z-docosenoyl)-sn-glycerol]含量下调。进一步对齐墩果酸、白桦脂酸、叶黄素3种关键代谢物进行组间验证,结果显示迷迭香组3种代谢物含量均较对照组显著上调(P<0.05,图5-E)。
图5 瘤胃差异代谢物筛选及关键代谢物定量验证

A:OPLS-DA得分图;B:OPLS-DA模型置换检验图;C:差异代谢物火山图;D:差异代谢物log2FC分布条形图;E:关键代谢物定量验证。A: OPLS-DA score plot; B: permutation test plot for OPLS-DA model; C: volcano plot of differential metabolites; D: bar plot of log2FC distribution of differential metabolites; E: quantitative verification of key metabolites.

R2Y:模型解释率 permutation-based model explanation rate;Q2:模型预测能力 permutation-based model predictive power;R2X:自变量解释率 independent variable explanatory rate;Statistics:统计;Up:上调 up-regulated;Down:下调 down-regulated;Insignificant:不显著;VIP:变量投影重要性 variable importance in projection;Oleanolic acid:齐墩果酸;Betulinic acid:白桦脂酸;Lutein:叶黄素;Neoxanthin:新黄质;Antheraxanthin:花药黄质;1-docosanoyl-2-(13Z-docosenoyl)-sn-glycerol:山嵛酰-2-(13Z-芥酰)-sn-甘油。

Fig.5 Screening of differential ruminal metabolites and quantitative verification of key metabolites

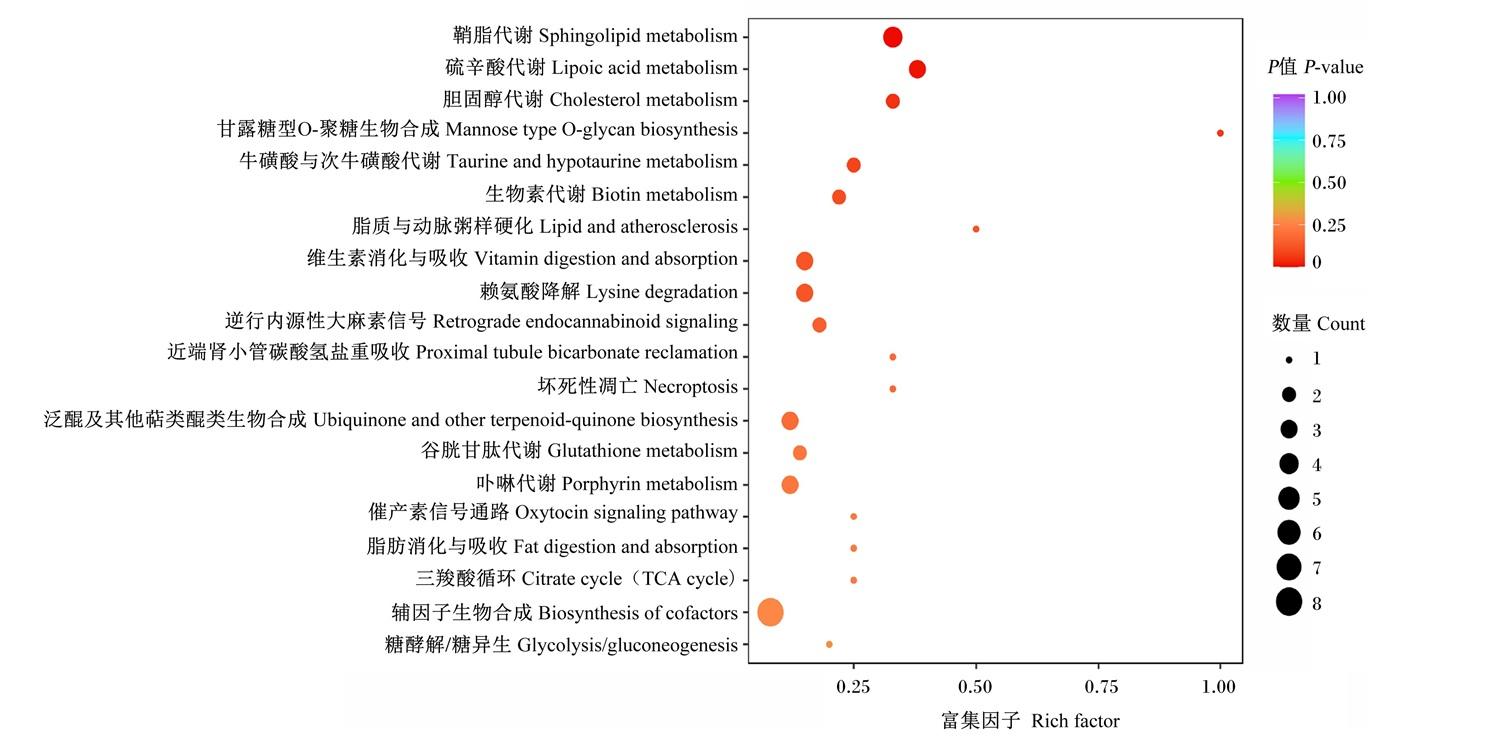
KEGG通路富集分析结果(图6)表明,迷迭香组与对照组的差异代谢物主要富集于脂质代谢、能量代谢及细胞信号传导相关生物学通路,包括鞘脂代谢、胆固醇代谢、谷胱甘肽代谢、三羧酸循环、脂肪消化与吸收、维生素消化与吸收、逆行内源性大麻素信号、坏死性凋亡等通路。
图6 瘤胃差异代谢物KEGG通路富集分析

Fig.6 KEGG pathway enrichment analysis of differential ruminal metabolites

2.6 瘤胃差异菌属与差异代谢物的相关性分析

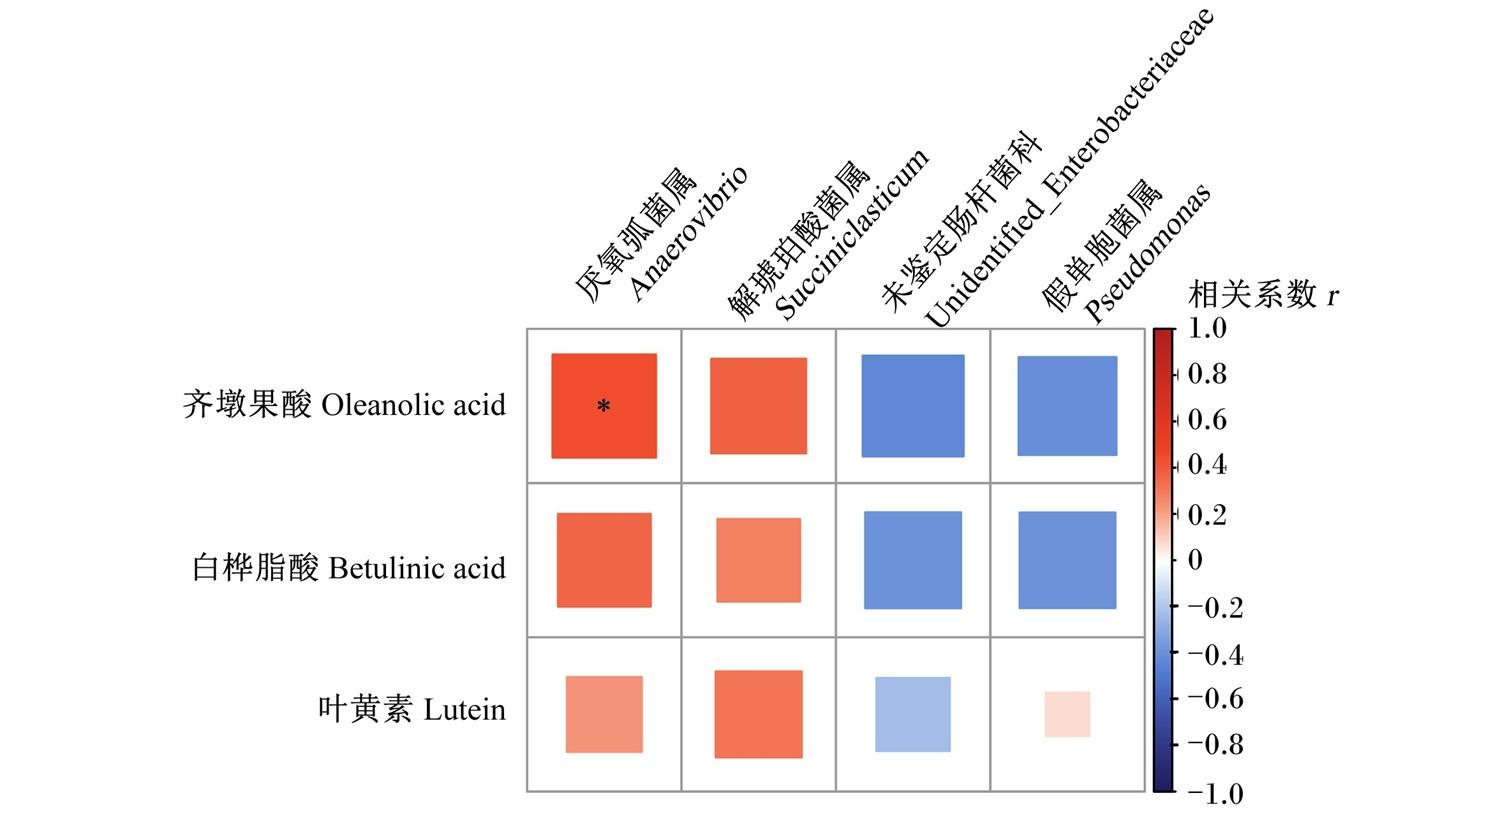
采用Spearman相关性分析探究瘤胃差异菌属(未鉴定肠杆菌科、假单胞菌属、厌氧弧菌属、解琥珀酸菌属)相对丰度与瘤胃液中3种差异代谢物(齐墩果酸、白桦脂酸、叶黄素)含量之间的相关关系,结果(图7)显示,齐墩果酸含量与厌氧弧菌属(P<0.05)和解琥珀酸菌属相对丰度(P>0.05)呈正相关;白桦脂酸含量与厌氧弧菌属以及解琥珀酸菌属相对丰度呈正相关(P>0.05);叶黄素含量与厌氧弧菌属和解琥珀酸菌属相对丰度呈正相关(P>0.05)。
图7 瘤胃差异菌属与差异代谢物相关性热图

Fig.7 Correlation heatmap between differential ruminal bacterial genera and differential metabolites

3 讨论

泌乳性能是衡量奶牛生产效益的核心指标,围产期作为奶牛生产周期中的关键过渡阶段,此时期的饲养管理水平与机体健康状况与后续奶牛泌乳性能表现密切相关[9]。Liu等[21]研究发现,为三河奶牛补饲20 g/(头·d)迷迭香提取物可显著提升其产奶量,并提高乳脂率、降低乳尿素氮含量,表明迷迭香提取物对奶牛泌乳性能有提升作用。本试验结果表明,围产期灌服20 g/(头·d)迷迭香提取物对奶牛干物质采食量无显著影响,但可显著提高产后第2、3、5个月及第1~6个月的平均泌乳量,也可在数值上提高乳脂和乳蛋白含量,与上述研究结果相符。值得注意的是,本试验中仅在产前15 d至产后15 d对奶牛进行了迷迭香提取物干预,提示围产期补充迷迭香提取物可能对奶牛泌乳性能产生了超越干预周期的持续积极影响。此外,本试验中2组奶牛所产犊牛的各项体尺指标均无显著差异,说明迷迭香提取物在提升母体泌乳性能的同时,并未对后代生长发育产生负面影响。Liu等[21]的研究还发现,补饲20 g/(头·d)迷迭香提取物可显著提高奶牛血清总抗氧化能力及SOD活性,同时降低血清MDA含量,提升机体抗氧化能力。本试验在高原围产期荷斯坦奶牛中也得到了相似结果,通过检测迷迭香提取物干预结束后次日晨饲前的血清样本发现,灌服20 g/(头·d)迷迭香提取物显著降低了奶牛血清MDA含量,并显著提高了血清GSH-Px活性,血清SOD活性虽无显著变化,但在数值上较对照组有所提高。GSH-Px作为清除细胞内过氧化氢和脂质过氧化物的关键酶,其活性上调是机体抗氧化防御系统被激活的直接标志[22]。高原地区存在低氧、高海拔的特殊环境,围产期奶牛本身会经历剧烈的生理代谢变化,生理应激与环境应激的双重作用,极易导致奶牛机体产生严重的氧化损伤,因此迷迭香提取物中酚类、萜类等活性成分的抗氧化作用[6]对高原围产期奶牛具有更为重要的生理意义。本试验中围产期奶牛抗氧化能力的提升,也为后期泌乳性能的提升奠定了重要代谢基础。
本试验从瘤胃微生物与代谢2个层面,进一步探究了迷迭香提取物对高原围产期奶牛的影响。在微生物层面,本研究通过16S rRNA测序发现,迷迭香提取物干预显著提高了瘤胃微生物多样性,且PCoA显示2组间微生物群落结构存在显著分离。此外,迷迭香组拟杆菌门相对丰度较对照组显著升高。拟杆菌门菌群与瘤胃中纤维降解和能量代谢密切相关[23],其相对丰度升高有助于增强瘤胃对结构性碳水化合物的分解能力。同时,迷迭香组潜在致病菌假单胞菌属相对丰度显著降低,这提示为高原围产期奶牛补充迷迭香提取物有助于构建更为健康的瘤胃微生态[24]。在属水平上,与对照组相比,迷迭香组厌氧弧菌属与解琥珀酸菌属相对丰度显著升高。厌氧弧菌属是反刍动物瘤胃内负责脂质水解的关键功能菌,其富集可能促进了瘤胃内脂质代谢通路的活跃[25];解琥珀酸菌属则负责将琥珀酸转化为丙酸,是瘤胃丙酸生成途径中的重要功能菌群[26]。厌氧弧菌属与解琥珀酸菌属相对丰度的同步提升,从微生物层面预示了瘤胃代谢特征存在向脂质代谢和丙酸生成方向增强的趋势。迷迭香组厌氧弧菌属相对丰度显著升高的结果与李世歌等[27]在贵州黑山羊断奶羔羊上的研究相互印证,该研究表明饲粮中添加含迷迭香酸的复合植物源添加剂可显著提高瘤胃琥珀酸弧菌属相对丰度。琥珀酸弧菌属与解琥珀酸菌属同属琥珀酸代谢相关功能菌群,二者在迷迭香提取物或迷迭香酸干预下均呈富集趋势,提示迷迭香活性成分对瘤胃琥珀酸代谢菌群具有普遍促进作用。
在代谢层面,本试验结果表明,迷迭香组瘤胃液中乙酸、丙酸、丁酸、戊酸和异戊酸含量均较对照组显著提升。VFA是反刍动物最主要的能量来源,其产量增加为泌乳提供了直接的能量物质基础[28]。吴薛等[29]通过瘤胃体外发酵试验也证实了迷迭香提取物可显著提高瘤胃液中丙酸等VFA含量。丙酸作为主要的生糖前体[30],其产量显著提高对于缓解围产期奶牛的能量负平衡具有重要意义,这可能与解琥珀酸菌属的富集直接相关,进一步证实微生物结构的改变驱动瘤胃发酵模式向有利于能量供应的方向转变。此外,本研究还发现迷迭香组瘤胃液中齐墩果酸、白桦脂酸和叶黄素等代谢物的含量较对照组显著上调,且其含量与厌氧弧菌属、解琥珀酸菌属等关键菌属相对丰度呈正相关。齐墩果酸与白桦脂酸是迷迭香中天然存在的化合物[31],其含量上调可能源于补充的迷迭香提取物。已有研究表明,齐墩果酸和白桦脂酸是核因子E2相关因子2(Nrf2)信号通路的天然激活剂,能够上调谷氨酰半胱氨酸连接酶(GCL)等谷胱甘肽(GSH)合成限速酶的表达[32-33],促进GSH的合成。叶黄素作为一种强效的直接抗氧化剂,能有效淬灭单线态氧并清除自由基[34],减轻氧化应激压力,间接减少了GSH的消耗。这3种代谢物构成了协同抗氧化防御模块,KEGG通路富集分析中谷胱甘肽代谢通路的显著激活,从系统层面验证了该抗氧化机制。
综上所述,迷迭香提取物可通过富集厌氧弧菌属、解琥珀酸菌属等关键微生物,促进齐墩果酸、白桦脂酸和叶黄素等抗氧化代谢物的生成,缓解围产期奶牛氧化应激。此外,补充迷迭香提取物后还可促进丙酸等VFA的生成,优化能量供应,缓解围产期奶牛能量负平衡,为其后续泌乳性能提升提供物质与生理基础。

4 结论

围产期灌服20 g/(头·d)迷迭香提取物可提升高原奶牛瘤胃挥发性脂肪酸含量与微生物多样性,富集有益菌群及抗氧化代谢物,增强机体抗氧化能力,优化泌乳性能。
[1]
ALERI J W, HINE B C, PYMAN M F, et al. Periparturient immunosuppression and strategies to improve dairy cow health during the periparturient period[J]. Research in Veterinary Science, 2016, 108:8-17.

[2]
FOX L K. Prevalence,incidence and risk factors of heifer mastitis[J]. Veterinary Microbiology, 2009, 134(1/2):82-88.

[3]
SALCEDO-TACUMA D, PARALES-GIRON J, PROM C, et al. Transcriptomic profiling of adipose tissue inflammation,remodeling,and lipid metabolism in periparturient dairy cows (Bos taurus)[J]. BMC Genomics, 2020, 21(1):824.

[4]
PENA E, EL ALAM S, SIQUES P, et al. Oxidative stress and diseases associated with high-altitude exposure[J]. Antioxidants, 2022, 11(2):267.

[5]
凡凡, 董旭, 李圆圆, 等. 复配迷迭香提取物对植物润肤油的抗氧化协同作用[J/OL]. 中国油脂, 2025:1-14(2025-08-12)[2025-11-10].https://doi.org/10.19902/j.cnki.zgyz.1003-7969.250300.html.

FAN F, DONG X, LI Y Y, et al. Synergistic antioxidant effects of compounded rosemary extracts in plant-based moisturizing oils[J/OL]. China Oils and Fats, 2025:1-14(2025-08-12)[2025-11-10].https://doi.org/10.19902/j.cnki.zgyz.1003-7969.250300.html. (in Chinese)

[6]
ZHANG L H, GE J W, GAO F, et al. Rosemary extract improves egg quality by altering gut barrier function,intestinal microbiota and oviductal gene expressions in late-phase laying hens[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):121.

[7]
LIU Y, LI C, HUANG X, et al. Dietary rosemary extract modulated gut microbiota and influenced the growth,meat quality,serum biochemistry,antioxidant,and immune capacities of broilers[J]. Frontiers in Microbiology, 2022, 13:1024682.

[8]
KONG F L, WANG S, DAI D W, et al. Preliminary investigation of the effects of rosemary extract supplementation on milk production and rumen fermentation in high-producing dairy cows[J]. Antioxidants, 2022, 11(9):1715.

[9]
ZHAO X W, ZHANG Y D, RAHMAN A, et al. Rumen microbiota succession throughout the perinatal period and its association with postpartum production traits in dairy cows:a review[J]. Animal Nutrition, 2024, 18:17-26.

[10]
朱宽, 沈宜钊, 徐宏建, 等. 犊牛期瘤胃微生物干预对其泌乳期生产性能的影响[J]. 动物营养学报, 2025, 37(10):6867-6879.

ZHU K, SHEN Y Z, XU H J, et al. Effects of rumen microbiota intervention during calf period on performance in lactation period[J]. Chinese Journal of Animal Nutrition, 2025, 37(10):6867-6879. (in Chinese)

[11]
LÜHRS H, GERKE T, MÜLLER J G, et al. Butyrate inhibits NF-κB activation in lamina propria macrophages of patients with ulcerative colitis[J]. Scandinavian Journal of Gastroenterology, 2002, 37(4):458-466.

[12]
LIU Y, SUN R F, LIN X P, et al. Procyanidins and its metabolites by gut microbiome improves insulin resistance in gestational diabetes mellitus mice model via regulating NF-κB and NLRP3 inflammasome pathway[J]. Biomedecine & Pharmacotherapie, 2022, 151:113078.

[13]
ZHAO R, SUN J J, LIN Y T, et al. Effects of dietary tannic acid and tea polyphenol supplementation on rumen fermentation,methane emissions,milk protein synthesis and microbiota in cows[J]. Microorganisms, 2025, 13(8):1848.

[14]
HE X, ZHANG M, LI S T, et al. Alteration of gut microbiota in high-fat diet-induced obese mice using carnosic acid from rosemary[J]. Food Science & Nutrition, 2022, 10(7):2325-2332.

[15]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[16]
丁学智, 龙瑞军, 淡瑞芳, 等. 瘤胃发酵液挥发性脂肪酸的气相色谱分析方法[J]. 甘肃农业大学学报, 2006, 41(2):24-26.

DING X Z, LONG R J, DAN R F, et al. A determination method based on gas chromatography for analysis of volatile fatty acids in rumen fluid[J]. Journal of Gansu Agricultural University, 2006, 41(2):24-26. (in Chinese)

[17]
马琳, 常忠娟, 刘兴医, 等. 中草药添加剂对西门塔尔肉牛血清免疫、细胞因子、抗氧化指标及直肠菌群的影响[J]. 饲料研究, 2024, 47(2):1-6.

MA L, CHANG Z J, LIU X Y, et al. Effects of Chinese herbal additives on serum immunity,cytokines,antioxidant indices,and rectal microbiota in Simmental beef cattle[J]. Feed Research, 2024, 47(2):1-6. (in Chinese)

[18]
YUN J Y, ZHU A R, YOU P H, et al. Untargeted metabolomic analysis of dietary rumen-protected choline supplementation in fattening lambs[J]. Frontiers in Veterinary Science, 2025, 12:1666044.

[19]
LUO Z Z, YONG K, LUO Q, et al. Altered fecal microbiome and correlations of the metabolome with plasma metabolites in dairy cows with left displaced abomasum[J]. Microbiology Spectrum, 2022, 10(6):e0197222.

[20]
ZHENG S, QIN G X, ZHEN Y G, et al. Correlation of oxidative stress-related indicators with milk composition and metabolites in early lactating dairy cows[J]. Veterinary Medicine and Science, 2021, 7(6):2250-2259.

[21]
LIU Z, JIANG A, KONG Z, et al. Multi-omics analysis reveals the mechanism of rosemary extract supplementation in increasing milk production in Sanhe dairy cows via the “rumen-serum-milk” metabolic pathway[J]. Animal Nutrition, 2025, 23:396-414.

[22]
CHANG Q Q, CAI H A, WEI L L, et al. Chitosan oligosaccharides alleviate acute heat stress-induced oxidative damage by activating ERK1/2-mediated HO-1 and GSH-Px gene expression in breast muscle of broilers[J]. Poultry Science, 2022, 101(1):101515.

[23]
DODD D, MACKIE R I, CANN I K. Xylan degradation,a metabolic property shared by rumen and human colonic Bacteroidetes[J]. Molecular Microbiology, 2011, 79(2):292-304.

[24]
SWAIN J, ASKENASY I, RUDLAND NAZEER R, et al. Pathogenicity and virulence of Pseudomonas aeruginosa:recent advances and under-investigated topics[J]. Virulence, 2025, 16(1):2503430.

[25]
PRIVÉ F, KADERBHAI N N, GIRDWOOD S, et al. Identification and characterization of three novel lipases belonging to families Ⅱ and Ⅴ from Anaerovibrio lipolyticus 5ST[J]. PLoS One, 2013, 8(8):e69076.

[26]
VAN GYLSWYK N O. Succiniclasticum ruminis gen.nov.,sp.nov.,a ruminal bacterium converting succinate to propionate as the sole energy-yielding mechanism[J]. International Journal of Systematic Bacteriology, 1995, 45(2):297-300.

[27]
李世歌, 刘凤丹, 陈彦伶, 等. 复合植物源添加剂对贵州黑山羊断奶羔羊生长性能、血清生化指标和瘤胃微生物区系的影响[J]. 饲料研究, 2025, 48(7):11-15.

LI S G, LIU F D, CHEN Y L, et al. Effects of a compound plant-based additive on growth performance,serum biochemical parameters,and rumen microbiome of weaned Guizhou black goat kids[J]. Feed Research, 2025, 48(7):11-15.( in Chinese)

[28]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

[29]
吴薛, 王思雨, 田娇娇, 等. 植物提取物与酿酒酵母发酵饲料筛选及其对奶牛瘤胃体外发酵的影响[J]. 动物营养学报, 2025, 37(4):2441-2453.

WU X, WANG S Y, TIAN J J, et al. Screening of plant extracts and brewer’s yeast-fermented feed and their effects on in vitro rumen fermentation in dairy cows[J]. Journal of Animal Nutrition, 2025, 37(4):2441-2453. (in Chinese)

[30]
RIGOUT S, HURTAUD C, LEMOSQUET S, et al. Lactational effect of propionic acid and duodenal glucose in cows[J]. Journal of Dairy Science, 2003, 86(1):243-253.

[31]
MENA P, CIRLINI M, TASSOTTI M, et al. Phytochemical profiling of flavonoids,phenolic acids,terpenoids,and volatile fraction of a rosemary (Rosmarinus officinalis L.) extract[J]. Molecules, 2016, 21:1576.

[32]
HAN Y W, WANG C C, LI X M, et al. Oleanolic acid reduces oxidative stress and neuronal apoptosis after experimental subarachnoid hemorrhage by regulating Nrf2/HO-1 pathway[J]. Drug Development Research, 2022, 83(3):680-687.

[33]
HUANG L, ZHU L J, OU Z P, et al. Betulinic acid protects against renal damage by attenuation of oxidative stress and inflammation via Nrf2 signaling pathway in T-2 toxin-induced mice[J]. International Immunopharmacology, 2021, 101( Pt B):108210.

[34]
MROWICKA M, MROWICKI J, KUCHARSKA E, et al. Lutein and zeaxanthin and their roles in age-related macular degeneration-neurodegenerative disease[J]. Nutrients, 2022, 14(4):827.

Outlines

/