RESEARCH PAPER

Effects of Nuciferine-Liposomes on Gut Microbiota and Serum Lipid Metabolism in High-Fat Fed Dogs

  • LIU Jing ,
  • LU Wei ,
  • CAO Yun ,
  • ZHU Jianping ,
  • LU Jiang , *
Expand
  • School of Companion Animals, Jiangsu Agri-Animal Husbandry Vocational College, Taizhou 225300, China
*associate professor, E-mail:

Received date: 2025-12-30

  Online published: 2026-08-13

Abstract

This experiment was conducted to evaluate the ameliorative effects of nuciferine-liposomes (NUC) on obesity in high-fat fed dogs, and to explore the possible mechanisms through gut microbiota and serum lipid metabolism. Twenty-four healthy male Beagle dogs, aged approximately 3 years and weighing (10.5±1.2) kg, were randomly assigned into four groups, with 6 dogs per group. Four groups were fed normal diet (ND group), normal diet supplemented with NUC (ND+NUC group), high-fat diet (HFD group), and high-fat diet supplemented with NUC (HFD+NUC group), respectively. After each meal, dogs in the ND+NUC group and HFD+NUC group received NUC suspension orally at 125 mg/kg body weight, whereas those in the ND and HFD groups received an equal volume of normal saline, twice daily. The pre- experimental period lasted 2 weeks, and the formal experimental period lasted 8 weeks. The results showed as follows: 1) compared with the HFD group, body weight gain, subcutaneous fat thickness and area of inguinal adipocyte of the HFD+NUC group were significantly lower (P<0.05); serum triglyceride and low-density lipoprotein cholesterol contents of the HFD+NUC group were also significantly lower (P<0.05). 2) Compared with the HFD group, Chao1 and Shannon indices of gut microbiota in the HFD+NUC group were significantly higher (P<0.05); the relative abundances of Firmicutes, Blautia and Lactobacillus in the HFD+NUC group were significantly higher (P<0.05), whereas those of Bacteroidetes, Bacteroides and Fusobacterium were significantly lower (P<0.05). 3) PICRUSt analysis indicated that NUC reversed high-fat diet-induced alterations in gut microbial gene functions, including downregulating the enrichment levels of lipid metabolism-related pathways such as glycerophospholipid metabolism, α-linolenic acid metabolism, peroxisome proliferator-activated receptor (PPAR) signaling pathway and lipopolysaccharide biosynthesis. 4) Compared with the HFD group, the levels of key lipid metabolites involved in glycerophospholipid metabolism and linoleic acid metabolism, including 1-arachidonoyl-lysophosphatidylcholine and palmitoleic acid, in the HFD+NUC group were significantly lower (P<0.05). In conclusion, NUC effectively ameliorates high-fat diet-induced obesity in dogs, as well as the associated dyslipidemia and fat accumulation. Its mechanism of action may involve the modulation of gut microbiota composition and serum lipid metabolite profiles, thereby restoring balance of the “gut microbiota-host metabolism” network.

Cite this article

LIU Jing , LU Wei , CAO Yun , ZHU Jianping , LU Jiang . Effects of Nuciferine-Liposomes on Gut Microbiota and Serum Lipid Metabolism in High-Fat Fed Dogs[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 6063 -6075 . DOI: 10.12418/CJAN2026.486

动物肥胖作为一种慢性代谢性疾病,不仅损害动物福利、降低其生存质量,还与胰岛素抵抗、心血管疾病、骨关节损伤及寿命衰减密切相关,现已成为伴侣动物健康管理面临的重要挑战[1]。现阶段临床实践中,针对犬肥胖的常规干预方式是饮食调控、运动疗法及药物干预,然而这些方法在治疗依从性和长期疗效方面都有明显局限,开发安全有效的辅助治疗策略具有重要的临床意义。宿主代谢稳态与肠道共生菌群的互作机制是目前肥胖防治相关研究的前沿方向。作为膳食营养与宿主代谢间的关键调控节点,肠道菌群通过调节能量吸收效率、短链脂肪酸生物合成、胆汁酸代谢循环以及系统性炎症反应等多种途径,深度参与宿主体内脂质代谢平衡与脂肪组织沉积的生理过程[2-4]。多项研究已证实,犬肥胖个体存在特征性的肠道菌群结构紊乱与功能异常[5-6],这一发现为开发基于肠道微生态调控的犬肥胖干预新策略提供了关键理论依据。
荷叶碱是传统药食同源植物荷叶的主要活性成分,已被证实具有调节脂质代谢、抑制脂肪生成、促进脂肪酸氧化以及改善胰岛素敏感性等多种药理作用[7]。然而,该化合物在天然状态下存在溶解性差、口服生物利用度低以及在胃肠道环境内不稳定等药代动力学缺陷[8],极大地限制了其临床应用开发。针对这一技术难题,本课题组已采用纳米递送技术和脂质体包裹策略,成功研发出荷叶碱脂质体(nuciferine-liposomes,NUC)制剂,前期试验数据显示该剂型提高了荷叶碱的生物利用度及抗肥胖效果[9]。然而,NUC能否通过“肠道菌群-宿主代谢”网络调节全身脂质代谢,进而改善肥胖,其具体作用机制尚不明确。因此,本研究运用16S rRNA基因测序技术分析肠道菌群结构变化,结合非靶向脂质代谢组学技术检测血清脂质代谢物,系统评估NUC对高脂饮食犬肥胖的干预效果及其潜在作用机制,为开发基于天然活性成分的犬类肥胖防治新方法提供科学依据。

1 材料与方法

1.1 试验材料

NUC由本课题组制备,前期研究已对其制备方法、理化性质及药代动力学特征进行了系统阐述[9]。该脂质体的主要特性参数如下:包封率为79.3%,平均粒径约为81 nm,Zeta电位约为-18 mV,保存稳定性良好。

1.2 试验动物

选取24只3岁左右、体重为(10.5±1.2) kg的健康雄性比格犬,犬均免疫齐全,试验开始前1个月内未使用任何抗菌药物,饲养于江苏泰斯特生物科技有限公司动物房[实验动物生产许可证:SCXK(苏)2021-0010]。

1.3 试验设计

试验通过江苏农牧科技职业学院动物福利与伦理委员会批准(编号:NSF202108)。
将选取的24只雄性比格犬随机分为4组,每组6只。4个组分别为常规饲粮组(ND组)、常规饲粮+NUC组(ND+NUC组)、高脂饲粮组(HFD组)和高脂饲粮+NUC组(HFD+NUC组)。ND组和ND+NUC组饲喂常规饲粮,HFD组和HFD+NUC组饲喂高脂饲粮。每次饲喂后,ND+NUC组和HFD+NUC组按125mg/kg体重的口服NUC混悬液,ND组和HFD组则口服等量生理盐水,每天2次,具体方法参考文献[9]。预试期2周,正试期8周。所有动物单笼饲养于温度为(25±2) ℃、相对湿度为50%~60%的动物房。每天08:30和16:30各喂食1次,并提供10 min自由活动。
常规饲粮参考NRC(2006)犬营养标准配制;高脂饲粮参考卢炜等[10]的方法,用28.0%猪油代替部分米粉、豆粕和鸡肉粉配制,试验饲粮组成及营养水平见表1。饲粮粗蛋白质、粗脂肪、粗纤维、粗灰分、赖氨酸、钙和总磷含量分别采用GB/T 6432—2018、GB/T 6433—2018、GB/T 6434—2022、GB/T 6438—2007、GB/T 18246—2019、GB/T 6436—2018、GB/T 6437—2018中方法测定,饲粮代谢能参照NRC(2006)犬营养标准进行计算。
表1 试验饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis)

项目
Items
常规饲粮
Normal diet
高脂饲粮
High fat diet
原料 Ingredients
米粉 Rice flour 38.6 24.6
豆粕 Soybean meal 20.0 13.0
鸡肉粉 Chicken powder 22.0 15.0
猪油 Lard 28.0
鱼粉 Fish meal 6.5 6.5
大豆油 Soybean oil 10.0 10.0
食盐 NaCl 0.5 0.5
石粉 Limestone 0.8 0.8
磷酸氢钙 CaHPO4 0.6 0.6
预混料 Premix1) 1.0 1.0
合计 Total 100.0 100.0
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 16.40 22.66
粗蛋白质 CP 28.16 20.16
粗纤维 CF 1.81 1.22
粗灰分 Ash 7.10 6.12
粗脂肪 EE 13.93 40.19
赖氨酸Lys 2.12 1.92
钙 Ca 1.52 1.52
总磷 TP 1.01 1.01

1)预混料为每千克饲粮提供 Premix provided the following per kg of diets:Fe 58 mg,Zn 149 mg,Cu 5.5 mg,VA 23 400 IU,VD 544 IU,VB1 10.3 mg,VB2 10.3 mg,VB6 16.8 mg,烟酸 nicotinic acid 61.4 mg,泛酸 pantothenic acid 6.6 mg,叶酸 folic acid 1 mg,生物素 biotin 0.1 mg,VB12 2.2 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.4 样本采集

试验结束后,每只动物在禁食状态下经头静脉采血,在4 ℃条件下1 200×g离心15 min后分离血清后,置于-80 ℃保存待测。随后使用舒泰(Zoletil,Virbac,法国)对动物实施肌肉注射麻,在外科麻醉状态下,由课题组执业兽医师切取腹股沟脂肪组织并收集直肠粪便样本,样本经液氮速冻后保存于-80 ℃待测,术后给予试验动物持续镇痛,并将动物置于温暖环境中恢复。

1.5 指标测定与方法

1.5.1 体重和采食量测定

试验开始前禁食12 h,空腹测定每只动物基础体重,试验期间每7 d在同一时间点(08:00,采食前)复测体重,每天08:00记录每只动物的投料量和剩余料量,统计实际采食量。体增重和平均日采食量计算公式如下:

体增重(kg)=终末体重(kg)-初始体重(kg);

平均日采食量(g/d)=总采食量(g)/试验天数(d)。

1.5.2 皮下脂肪层厚度测定

试验开始前及结束后,使用兽用B超诊断仪(MyLab 9VET,Esaote,意大利)的7.5 MHz高频线阵探头,对每只动物腹部脐后区域实施扇形超声扫描,通过分析超声图像测定皮下脂肪层厚度,每只重复检测3次后计算平均值。

1.5.3 腹股沟脂肪组织学观察与细胞面积测定

选取部分腹股沟脂肪组织样本进行快速复温处理,经4%多聚甲醛溶液固定后制成厚度为4 μm石蜡切片,经苏木精-伊红(HE)染色后于光学显微镜下观察,采用Image J2图像分析系统定量计算脂肪细胞面积。

1.5.4 血脂指标测定

采用全自动生化分析仪(BS-200,深圳迈瑞生物医疗电子股份有限公司)测定血清中甘油三酯(TG)、总胆固醇(TC)、高密度脂蛋白胆固醇(HDL-C)和低密度脂蛋白胆固醇(LDL-C)含量。

1.5.5 粪便样本16S rRNA基因测序与分析

每只动物取150 mg直肠粪便样本,使用粪便DNA提取试剂盒(QIAamp,Qiagen,德国)按照说明书提取DNA。经质检合格后,采用PCR方法扩增16S rRNA的V3~V4区基因片段,所用引物为341F:5'-CCTACGGGNGGCWGCAG-3'和806R:5'-GGACTACHVGGGTATCTAAT-3'。PCR产物经2%琼脂糖凝胶电泳检测,并使用PCR纯化试剂盒(QIAquick,Qiagen,德国)纯化后,构建Illumina DNA文库,随后在Illumina MiSeq平台进行250 bp双端测序。
测序数据通过QIIME V1.7.0软件默认参数进行质量过滤,去除嵌合体序列,获得高质量序列。根据样本最低测序深度对序列数据进行标准化,使用核糖体数据库项目(RDP)分类器比对SILVA数据库(https://www.arb-silva.de),将相似度≥97%的序列聚类为操作分类单元(OTUs),并通过SILVA数据库比对获得物种注释结果。α多样性采用Chao1指数和Shannon指数评估[11],β多样性通过加权UniFrac距离矩阵的主坐标分析(PCoA)进行评估[12],采用置换多元方差分析(PERMANOVA/Adonis)检验组间差异。使用UPGMA聚类法分析样本间物种组成的相似性[13]。通过线性判别分析效应大小(LEfSe)分析筛选组间差异菌群[线性判别分析(LDA)>2.0,P<0.05],并基于京都基因与基因组百科全书(KEGG)通路数据库,利用PICRUSt预测肠道菌群基因功能[14]

1.5.6 腹股沟脂肪组织样本实时荧光定量PCR测定

取腹股沟脂肪组织样本快速解冻,采用TRIzol法从组织中提取总RNA。使用QuantiTect Reverse Transcription Kit(Qiagen,德国)将RNA反转录为cDNA,反应体系为20 μL,取1 μg总RNA,加入2 μL 7×g DNA Wipeout Buffer,无酶水补至14 μL,42 ℃孵育2 min后置冰上;再加入4 μL 5×Quantiscript RT Buffer、1 μL RT Primer Mix及1 μL Quantiscript Reverse Transcriptase,20 μL总体系于42 ℃孵育15 min,95 ℃灭活3 min,cDNA于-20 ℃保存备用。以合成的cDNA为模板,以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,对固醇调节元件结合蛋白1(SREBP1)、脂肪酸合成酶(FAS)、CCAAT增强子结合蛋白α(C/EBPα)和过氧化物酶体增殖物激活受体γ(PPARγ)基因进行检测,按常规操作方法进行实时荧光PCR扩增,目的基因引物由生工生物工程 (上海) 股份有限公司合成,引物序列见表2。采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表2 PCR引物序列

Table 2 Primer sequences for PCR

基因
Genes
登录号
Accession No.
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
固醇调节元件结合蛋白1
SREBP1
XM_038664048 F:GACAGGGAGTTCTCTGACGC
R:CCAGGCTGAACTGGTGTAGA
182
脂肪酸合成酶
FAS
XM_038675370 F:CCAGAAACTCGTGCTGACCT
R:CCATCTAGCGAGCCGATGTT
126
CCAAT增强子结合蛋白α
C/EBPα
XM_005616766 F:CTCTAACCGAGGAGTCGTGC
R:CTTCGCATGTACCAGAAGAGC
207
过氧化物酶体增殖物激活受体γ
PPARγ
XM_038426360 F:CGCCGCCGCAGAAACTA
R:GCAGGCTCCACTTTGATTGC
261
甘油醛-3-磷酸脱氢酶
GAPDH
NM_001003142 F:GTAGTGAAGCAGGCATCGGA
R:GTCGAAGGTGGAAGAGTGGG
108

1.5.7 血清样本液相色谱-质谱法(LC-MS)分析

将100 μL血清样本加入300 μL预冷的50%甲醇溶液中,混匀15 s后,12 000×g离心15 min。转移上清液,在氮气下蒸发干燥,将干燥残渣溶于100 μL预冷的50%甲醇溶液中,在4 ℃条件下12 000×g离心15 min后,转移上清液至样品瓶中进行LC-MS分析。
色谱条件:采用T3色谱柱(2.1 mm×100 mm,1.8 μm),进样量10 μL,柱温4 ℃,流速0.4 mL/min。以0.1%甲酸(流动相A)和乙腈(流动相B)进行梯度洗脱。洗脱液经电喷雾电离源(正离子模式)导入质谱仪进行分析。质谱条件:采集质荷比(m/z)50~1 500数据,取等量混合样品作为质量控制(QC)样本。数据处理:使用Progenesis QI V2.0分析原始数据并进行标准化,代谢物鉴定依据标准:一级质谱质量误差<5×10⁻⁶,二级质谱碎片与数据库匹配,同位素分布匹配度>80%,通过脂质代谢物与通路策略(LIPID MAPS)数据库(https://www.lipidmaps.org)进行比对确认代谢物结构。通过正交偏最小二乘判别分析(OPLS-DA)筛选差异代谢物[变量投影重要性(VIP)>1,P<0.05],并利用KEGG数据库进行通路富集分析。

1.6 数据统计与分析

数据通过SPSS 23.0软件进行单因素方差分析,然后采用Tukey氏法进行组间差异比较;采用Pearson相关性分析来计算参数之间的相关系数。数据以“平均值±标准差”表示,P<0.05表示差异显著。

2 结果与分析

2.1 NUC对高脂饮食犬肥胖的改善效果

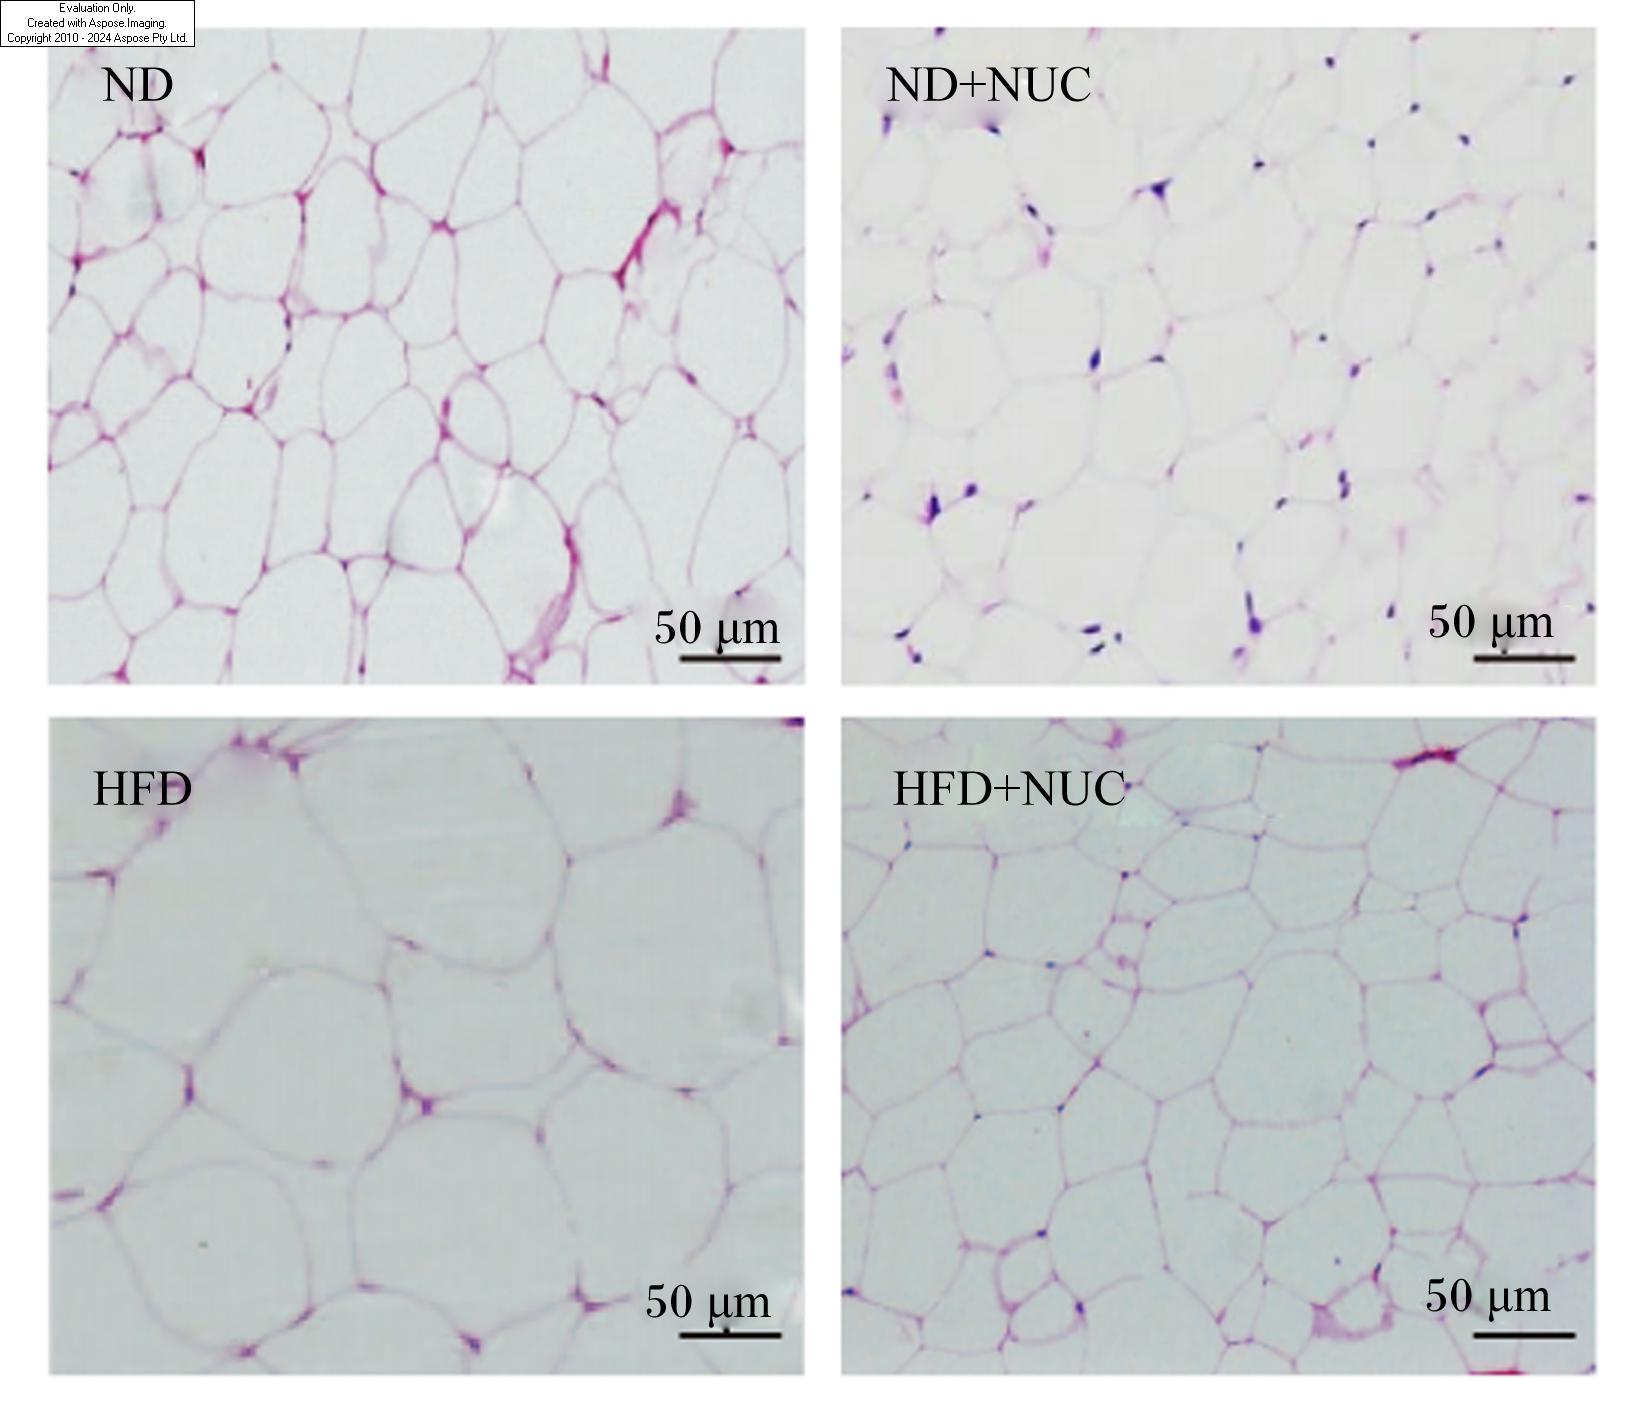
表3所示,试验期间,ND组和ND+NUC组动物体重无显著差异(P>0.05);1~3周,HFD组、HFD+NUC组与ND组动物体重无显著差异(P>0.05);4~8周时,HFD组体重显著高于ND组(P<0.05),HFD+NUC组体重显著低于HFD组(P<0.05)。如表4所示,4个组试验动物平均日采食量无显著差异(P>0.05);与ND组相比,HFD组体增重和皮下脂肪厚度显著升高(P<0.05);与HFD组相比,HFD+NUC体增重和皮下脂肪厚度显著降低(P<0.05)。如表4图1所示,与ND组相比,HFD组腹股沟脂肪细胞面积显著增加(P<0.05);与HFD组相比,HFD+NUC组腹股沟脂肪细胞面积显著减少(P<0.05)。
表3 NUC对高脂饮食犬体重的影响

Table 3 Effects of NUC on body weight in high-fat fed dogskg

时间
Times/周
组别 Groups
ND ND+NUC HFD HFD+NUC
0 10.26±0.22 10.33±0.23 10.42±0.25 10.22±0.20
1 10.28±0.23 10.28±0.23 10.59±0.25 10.36±0.25
2 10.53±0.25 10.36±0.25 10.76±0.25 10.62±0.22
3 10.50±0.25 10.45±0.25 11.05±0.25 10.76±0.25
4 10.69±0.28a 10.48±0.27a 11.54±0.25c 10.85±0.23b
5 10.71±0.26a 10.59±0.26a 12.06±0.28c 11.07±0.23b
6 10.75±0.26a 10.66±0.26a 13.05±0.31c 11.41±0.26b
7 10.82±0.27a 10.70±0.27a 13.77±0.29c 11.85±0.27b
8 10.87±0.21a 10.75±0.29a 14.08±0.33c 12.24±0.28b

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

表4 NUC对高脂饮食犬体增重、平均日采食量及皮下脂肪厚度和腹股沟脂肪面积的影响

Table 4 Effects of NUC on BWG, ADFI, subcutaneous fat thickness and area of inguinal adipocytes in high-fat fed dogs

项目
Items
组别 Groups
ND ND+NUC HFD HFD+NUC
体增重 BWG/kg 0.75±0.12a 0.82±0.21a 3.76±0.42c 2.27±0.25b
平均日采食量 ADFI/(g/d) 324.5±20.1 315.8±22.4 345.9±25.4 336.2±26.3
皮下脂肪厚度 Subcutaneous fat thickness/mm
试验前 Before the experiment 6.43±0.63 6.42±0.55 6.51±0.63 6.48±0.67
试验后 After the experiment 6.54±0.54a 6.35±0.58a 14.15±1.26c 9.56±0.92b
腹股沟脂肪细胞面积
Area of inguinal adipocytes/×103 μm2
1 485±187a 1 426±159a 4 352±365c 2 386±244b
图1 NUC对高脂饮食犬腹股沟脂肪细胞形态的影响

ND:ND组 ND group;ND+NUC:ND+NUC组 ND+NUC group;HFD+NUC:HFD+NUC组 HFD+NUC group;HFD:HFD组 HFD group。下图同 the same as below。

Fig.1 Effects of NUC on inguinal adipocyte morphology in high-fat fed dogs

2.2 NUC对高脂饮食犬血脂指标影响

表5所示,与ND组相比,ND+NUC组血清TG、TC、LDL-C和HDL-C含量无显著差异(P>0.05);与ND组相比,HFD组血清TG、TC及LDL-C含量显著升高(P<0.05);与HFD相比,HFD+NUC组血清TG和LDL-C含量显著降低(P<0.05)。
表5 NUC对高脂饮食犬血脂指标的影响

Table 5 Effects of NUC on serum lipid indicators in high-fat fed dogsm

项目
Items
组别 Groups
ND ND+NUC HFD HFD+NUC
甘油三酯 TG 1.38±0.19a 1.31±0.16a 1.72±0.15b 1.46±0.13a
总胆固醇 TC 4.56±0.56a 4.42±0.46a 5.58±0.51b 4.83±0.42ab
低密度脂蛋白胆固醇 LDL-C 2.62±0.24a 2.57±0.28a 3.18±0.28b 2.75±0.23a
高密度脂蛋白胆固醇 HDL-C 1.43±0.15 1.46±0.12 1.33±0.11 1.31±0.13

2.3 NUC对高脂饮食犬肠道菌群的影响

2.3.1 肠道菌群多样性

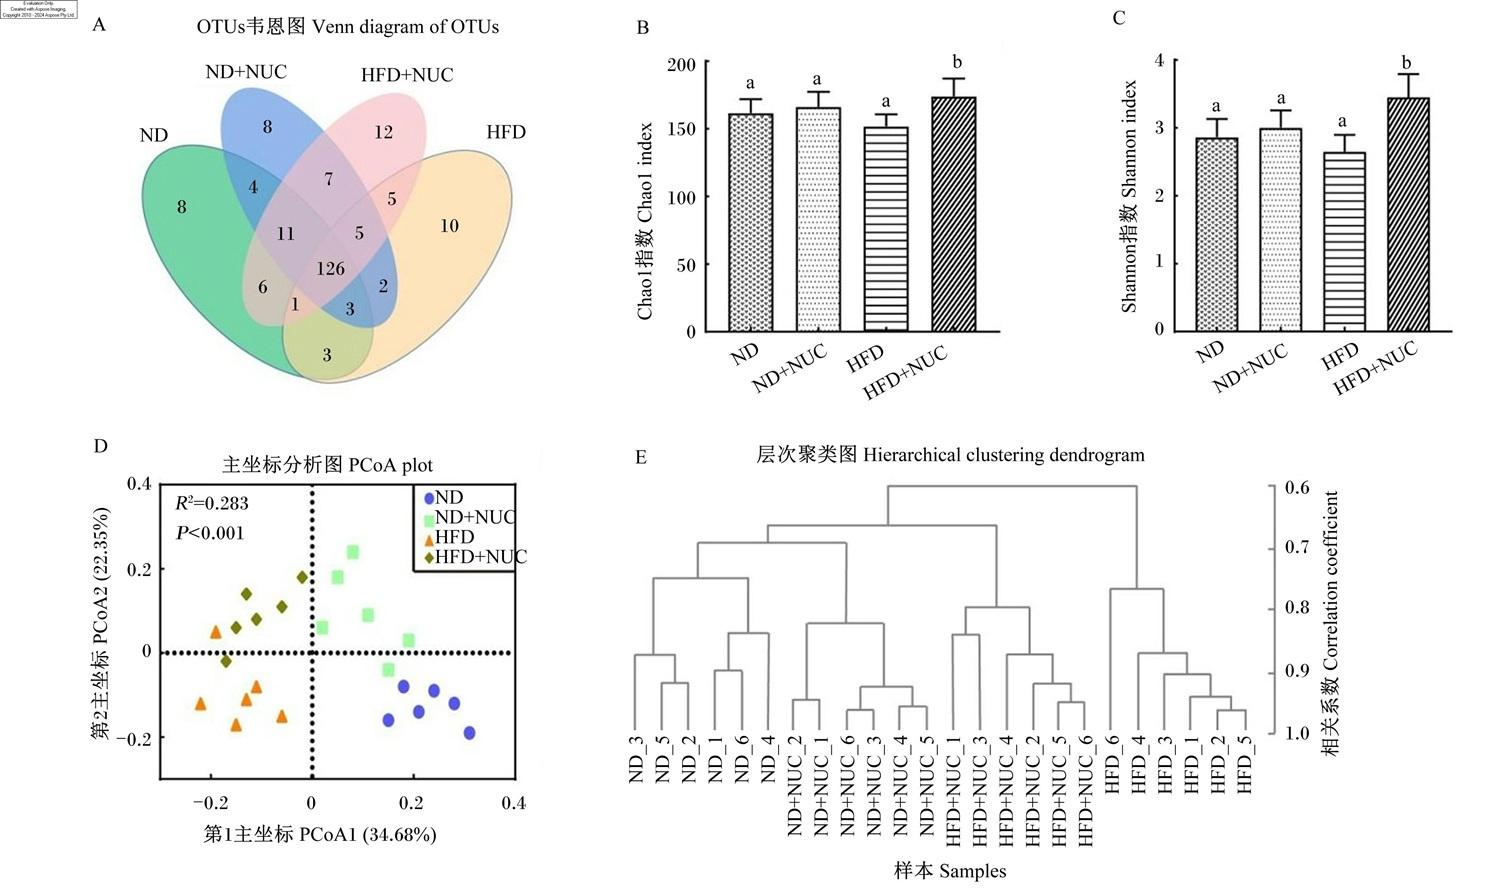
根据OTUs韦恩图(图2-A)显示,ND组与HFD组共检测到184个OTUs,其中2组共有OTUs数量为133个,占总数的72.23%;HFD组与HFD+NUC组共检测到191个OTUs,其中2组共有OTUs数量为137个,占总数的71.73%。
图2 NUC对高脂饮食犬肠道菌群多样性的影响

数据柱形标注相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effect of NUC on gut microbiota diversity in high-fat fed dogs

Value columns with the same small letters mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

图2-B图2-C所示,α多样性结果表明,与ND组相比,HFD组肠道菌群Chao1指数和Shannon指数无显著差异(P>0.05);与HFD组相比,HFD+NUC组肠道菌群Chao1指数和Shannon指数显著升高(P<0.05)。如图2-D所示,基于加权UniFrac距离的PCoA图显示,第1主坐标和第2主坐标的贡献率分别为34.68%和22.35%,4组样本在组内呈现明显聚集,组间呈现一定分离趋势;组间肠道菌群β多样性存在显著差异(R2=0.283,P<0.01)。根据聚类分析(图2-E)显示,ND+NUC组和ND组的肠道菌群整体构成相似度较高,而HFD组与HFD+NUC组的菌群结构存在差异。

2.3.2 肠道菌群组成与结构

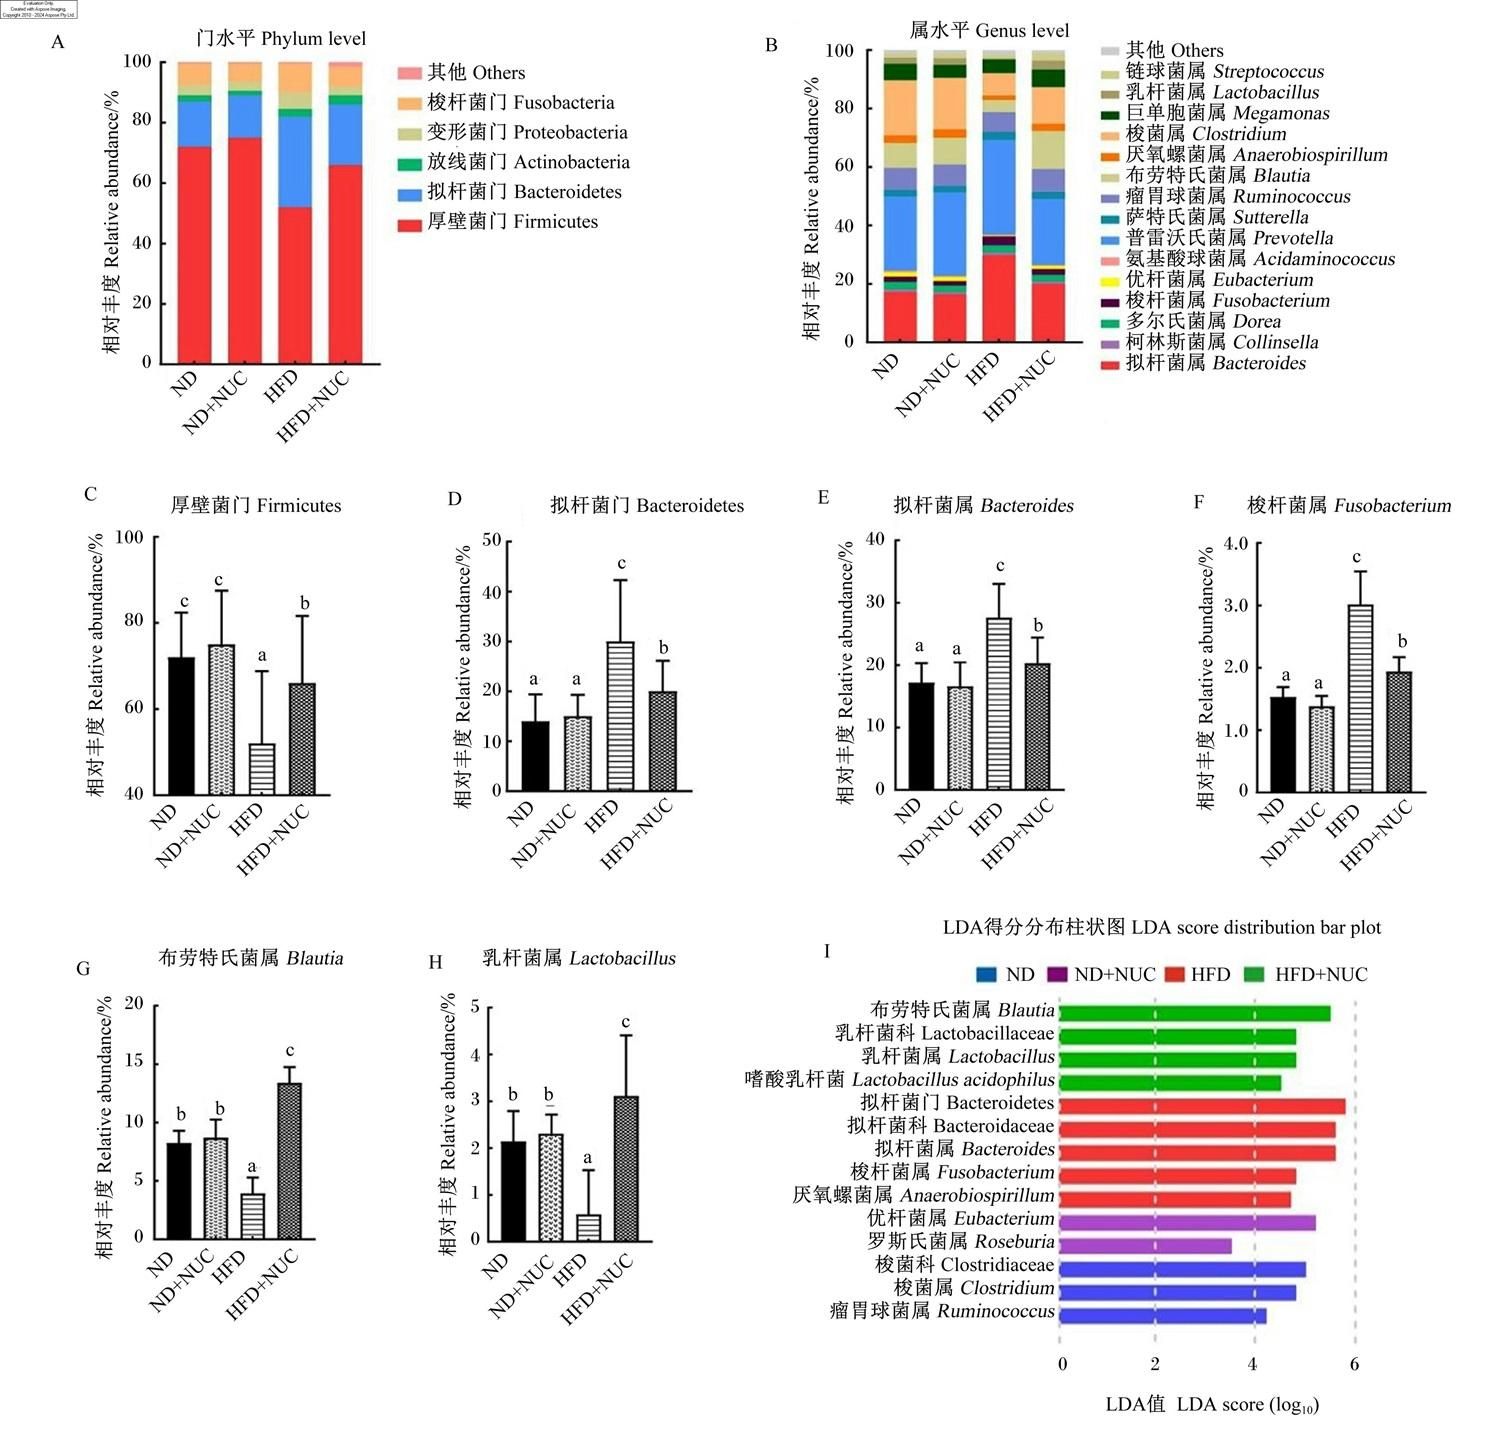
图3-A所示,在门水平上,厚壁菌门、拟杆菌门、梭杆菌门、变形菌门和放线菌门为4组肠道共有的优势菌门,其中厚壁菌门和拟杆菌门的相对丰度共占门水平物种总丰度的80%以上。如图3-C图3-D所示,与ND组相比,HFD组厚壁菌门相对丰度显著降低(P<0.05),而拟杆菌门丰度显著升高(P<0.05),厚壁菌门/拟杆菌门的比值降低;与HFD组相比,HFD+NUC组厚壁菌门相对丰度显著升高(P<0.05),拟杆菌门相对丰度显著降低(P<0.05),厚壁菌门/拟杆菌门的比值提高。
图3 NUC对高脂饮食犬肠道菌群门和属水平分布的影响

Fig.3 Effects of NUC on distribution of gut microbiota at phylum and genus levels in high-fat fed dogs

图3-B所示,在属水平上,拟杆菌属、普雷沃氏菌属、布劳特氏菌属及梭菌属为4组肠道的优势菌属。如图3-E图3-F图3-G图3-H所示,与ND组相比,HFD组拟杆菌属和梭杆菌属相对丰度显著升高(P<0.05),而布劳特氏菌属和乳杆菌属的相对丰度显著降低(P<0.05);与HFD组相比,HFD+NUC组的拟杆菌属和梭杆菌属相对丰度显著降低(P<0.05),而布劳特氏菌属和乳杆菌属的相对丰度显著升高(P<0.05)。
LEfSe分析结果(图3-I)显示,HFD组肠道主要富集了拟杆菌门、拟杆菌科、拟杆菌属、梭杆菌属和厌氧螺菌属,HFD+NUC组肠道主要富集了布劳特氏菌属、乳杆菌科、乳杆菌属和嗜酸乳杆菌。

2.3.3 肠道菌群基因功能预测

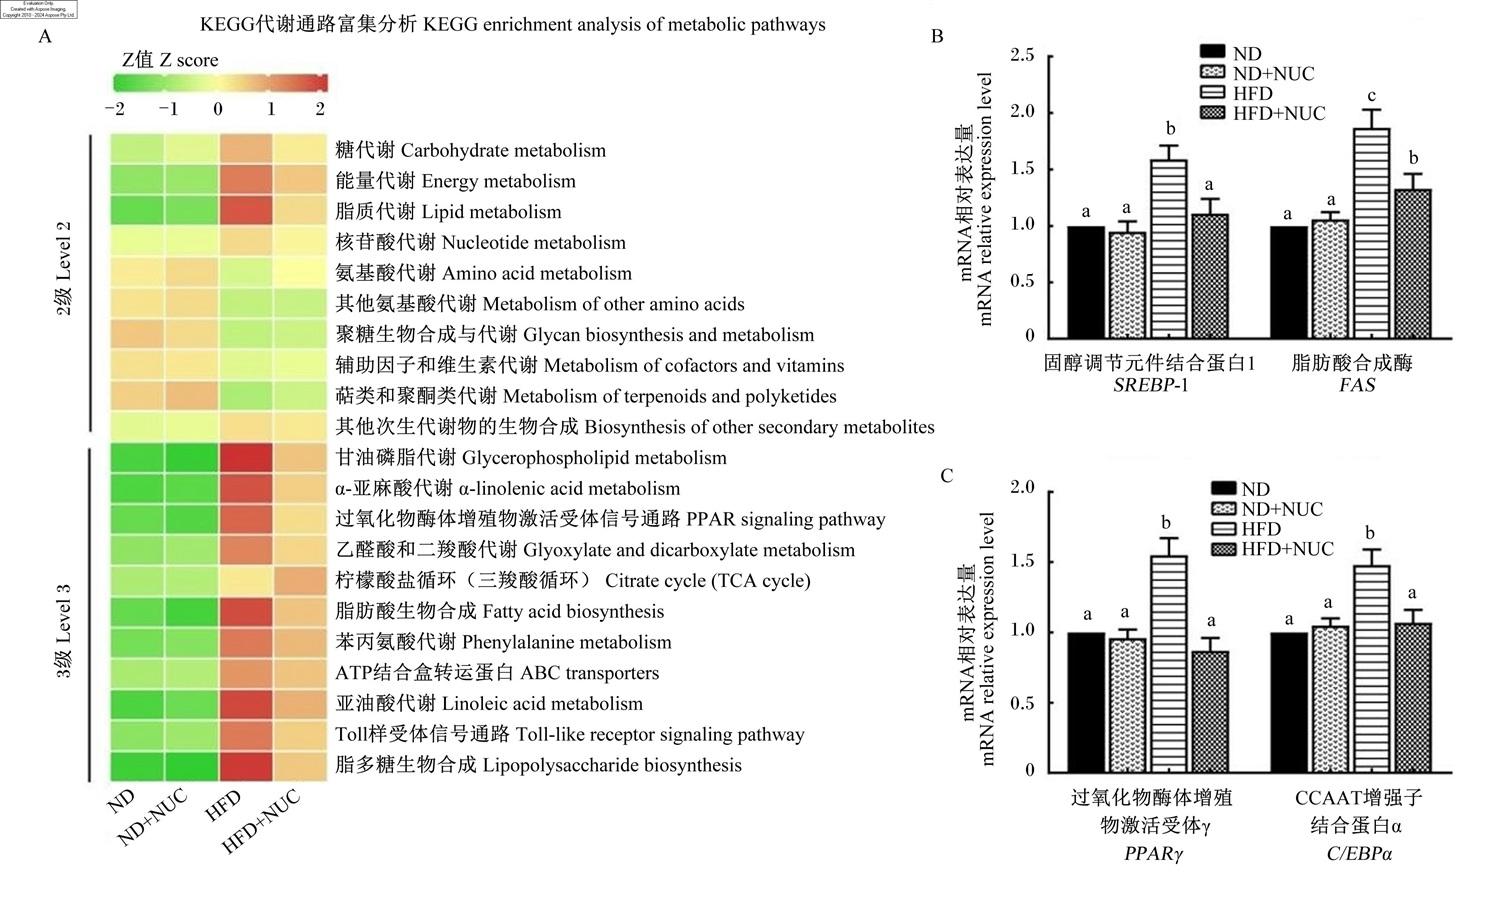
图4-A所示,基于KEGG的PICRUSt预测结果显示,在2级通路水平上,HFD组肠道菌群主要富集于能量代谢和脂质代谢通路;在3级通路水平上,HFD组肠道菌群主要富集于以下6条通路:甘油磷脂代谢、α-亚麻酸代谢、过氧化物酶体增殖物激活受体(PPAR)信号通路、脂肪酸生物合成、亚油酸代谢和脂多糖生物合成通路。饲粮添加NUC降低了高脂饮食犬肠道菌群基因在这些通路中的富集水平。
图4 肠道菌群代谢功能预测及脂质代谢相关基因表达

红色表示高富集,绿色表示低富集。

Fig.4 Prediction of metabolic functions of gut microbiota and expression of lipid metabolism related genes

Red represented high enrichment, while green represented low enrichment.

图4-B图4-C所示,通过检测腹股沟脂肪组织中脂质代谢相关基因表达发现,与ND组相比,HFD组中SREBP1、FASPPARγC/EBPα的mRNA相对表达量显著升高(P<0.05);而与HFD组相比,HFD+NUC组上述4种基因的mRNA相对表达量均显著降低(P<0.05)。

2.4 NUC对高脂饮食犬血清脂质代谢组的影响

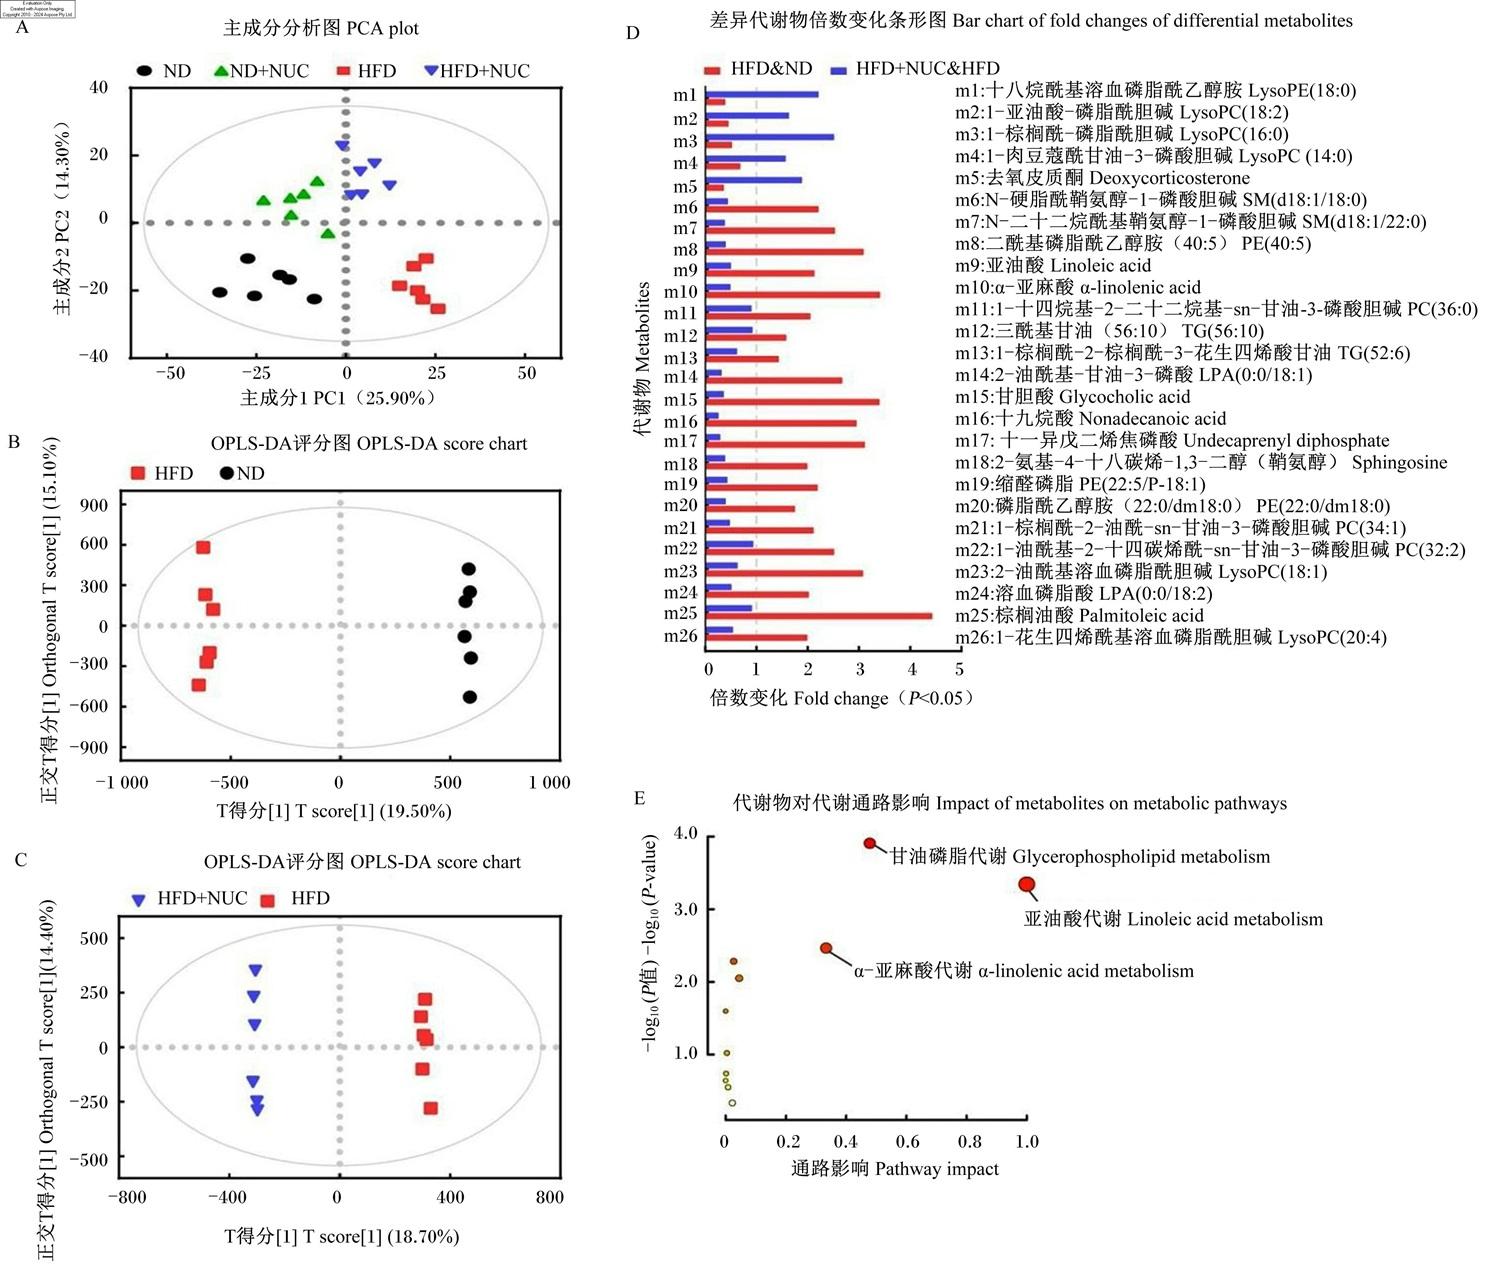
血清非靶向脂质代谢组PCA结果如图5-A所示,ND组和ND+NUC组样本聚集在主成分1(PC1)轴左侧,而HFD组和HFD+NUC组样本聚集在PC1轴右侧,表明高脂饮食是组间代谢物差异的主要因素;此外,ND+NUC组和HFD+NUC组样本位于主成分2(PC2)轴上方,而ND组和HFD组样本位于PC2轴下方,提示NUC是组间代谢物差异的第2大因素。OPLS-DA分析(图5-B图5-C)显示,HFD组与ND组以及HFD+NUC组与HFD组的代谢轮廓均实现明显分离,模型评价参数R2Y=0.82和Q2=0.78均高于可接受阈值(R2Y>0.65,Q2>0.50)(置换检验Q2截距为-0.34),证实了高脂饮食和NUC对犬血清代谢物具有明显影响。
图5 NUC对高脂饮食犬血清脂质代谢组的影响

Fig.5 Effects of NUC on serum lipid metabolome in high-fat fed dogs

图5-D所示,与ND组相比,HFD组有21个代谢物水平显著升高(P<0.05),5个代谢物水平显著降低(P<0.05),且这些关键差异代谢物的变化趋势在HFD+NUC组中都发生了逆转。具体而言,与HFD组相比,HFD+NUC组1-花生四烯酰基溶血磷脂酰胆碱、棕榈油酸和溶血磷脂酸等代谢物水平显著降低(P<0.05);而十八烷酰基溶血磷脂酰乙醇胺、1-亚油酸-磷脂酰胆碱和1-棕榈酰-磷脂酰胆碱等代谢物水平显著升高(P<0.05)。这些代谢物主要参与亚油酸代谢、甘油磷脂代谢和α-亚麻酸代谢通路(图5-E)。

3 讨论

采用高脂饮食喂养建立的犬肥胖模型是探究肥胖及相关代谢异常的有效手段,多项研究已证实高脂饮食连续饲喂8周可成功建立犬肥胖模型[15-18]。本研究观察到高脂饮食组试验动物的体重增长明显,皮下脂肪堆积增厚,血脂指标显著升高,并出现脂肪细胞体积增大的典型肥胖特征,表明模型建立成功。高脂饮食同时补喂NUC可明显改善这些异常指标,提示NUC对高脂饮食诱发的犬类肥胖具有改善效果,这可能与脂质体剂型提高了荷叶碱的生物利用度有关[9]。目前犬用抗肥胖药物主要是微粒体甘油三酯转运蛋白(MTP)抑制剂类,但该类药物的生物利用度较低,且常见呕吐、腹泻及厌食等不良反应[19-20]。此外,益生菌及绿茶多酚等天然抗肥胖制剂虽然在犬类中显示出一定的减重效果,但益生菌和绿茶多酚起效所需剂量较高、干预周期较长[21-22]。本研究中,饲粮添加NUC对常规饲粮喂养犬的体增重和皮下脂肪厚度等指标无显著影响,表明NUC对正常饮食状态下的脂质代谢调控作用有限;本课题组前期研究也表明NUC具有良好的安全性,肝脏、肾脏功能等指标未见明显不良影响[9]
肠道菌群作为动物体内的微生态系统,对宿主的能量与脂质代谢发挥着关键的调控作用,并与多种代谢性疾病的发生发展密切相关[23]。在门水平上,厚壁菌门/拟杆菌门的比值升高与能量获取增加和脂肪积累有关[24]。在属水平上,拟杆菌属是哺乳动物肠道中优势菌属之一,在脂质代谢调控中呈现出菌株特异性:脆弱拟杆菌(Bacteroides fragilis)菌株会恶化高脂饮食小鼠的肥胖,增加肝脏脂质积累,并上调脂质代谢相关基因表达[25];而单形拟杆菌(Bacteroides uniformis)菌株可通过促进胆汁酸代谢,改善T2DM小鼠的糖脂代谢[26]。另外,梭杆菌属的异常富集也与脂质代谢失调相关[27]。长期高脂饮食会导致肠道菌群紊乱,破坏肠道屏障,增加内毒素入血,引发慢性低度炎症,进而引起肥胖[28-29]。在本研究中,与ND组相比,HFD组厚壁菌门相对丰度显著降低,而拟杆菌门丰度显著升高,可见高脂饮食降低了肠道菌群厚壁菌门/拟杆菌门的比值,显著升高了拟杆菌属和梭杆菌属的相对丰度;而饲粮添加NUC不仅可逆转这种失调现象,还提高了布劳特氏菌属、乳杆菌科、乳杆菌属等有益菌群相对丰度,且NUC对肠道菌群调控作用与肥胖相关指标的改善呈现一致的变化趋势。这些结果说明,NUC可能通过重塑肠道菌群结构来发挥其降脂及改善肥胖的作用。本研究观察到高脂饮食致使厚壁菌门/拟杆菌门的比值下降的现象,和既往研究的小鼠肥胖模型存在差异[24]。这可能与高脂饲粮中脂肪含量与类型以及动物模型差异等因素有关,具体还需进一步研究验证。
本研究运用基于KEGG的PICRUSt软件对肠道菌群基因功能进行预测分析。结果显示,HFD组的肠道菌群基因功能在多个脂质代谢相关通路呈现特征性富集,如甘油磷脂代谢、α-亚麻酸代谢、PPAR信号通路、脂肪酸生物合成、亚油酸代谢以及脂多糖生物合成通路等,而NUC干预成功逆转了这些通路的富集。研究表明,肠道菌群可通过其代谢产物(如短链脂肪酸、胆汁酸)调控PPAR信号通路及甘油磷脂代谢通路[30-32]。甘油磷脂代谢紊乱会破坏细胞膜完整性并干扰胰岛素信号转导,加重胰岛素抵抗与肥胖进程[33-34],α-亚麻酸代谢失调与慢性低度炎症反应以及脂质代谢紊乱紧密相关[35],PPAR信号通路异常激活会促使脂肪组织增生以及脂质蓄积[36],脂肪酸生物合成通路过度表达可提高内源性脂肪酸及甘油三酯的合成效率,导致肝脏和脂肪组织出现病理性脂质沉积[37],亚油酸代谢可通过调控炎症反应和胰岛素敏感性影响肥胖发展[38],脂多糖生物合成通路的富集可能引发代谢性内毒素血症和系统性慢性炎症,促进肥胖发生[39]。本研究检测了脂肪组织中脂质代谢相关基因表达发现,与ND组相比,HFD组中SREBP1、FASPPARγC/EBPα的mRNA相对表达量均显著升高,饲粮中添加NUC可显著下调这4种成脂相关转录因子和关键酶的转录水平。这一结果提示,NUC可能通过“肠-脂肪轴”双向调控,同时抑制肠道菌群脂质合成潜力和宿主脂肪生成程序。
NUC可能通过调节“肠道菌群-宿主代谢”互作网络来改善高脂饮食诱导的肥胖。后续研究可采用菌群移植试验,结合宏基因组学或宏转录组学等技术,进一步揭示NUC通过调控肠道菌群发挥抗肥胖效应的具体分子机制。

4 结论

综上所述,长期高脂饮食会改变犬的肠道菌群结构和血清脂质代谢物,同时诱发肥胖;饲粮添加NUC可有效改善高脂饮食诱导的犬肥胖状况,这可能与NUC通过维持肠道菌群稳态和下调脂质代谢相关基因表达来促进机体脂质代谢平衡密切相关。本研究为NUC在犬肥胖防治方面的应用提供了有力的试验证据。
[1]
PORSANI M Y H, TEIXEIRA F A, OLIVEIRA V V, et al. Prevalence of canine obesity in the city of São Paulo,Brazil[J]. Scientific Reports, 2020, 10(1):14082.

[2]
RONG B H, XIA T Y, ZHANG T T, et al. Gut microbiota:a potential manipulator for host adipose tissue and energy metabolism[J]. The Journal of Nutritional Biochemistry, 2019, 64:206-217.

[3]
薛艺丽, 孟祥璟, 高若琳, 等. 短链脂肪酸对肥胖的调控机制研究进展[J]. 中国预防医学杂志, 2024, 25(6):812-819.

XUE Y L, MENG X J, GAO R L, et al. Research progress on the regulation mechanism of short-chain fatty acids on obesity[J]. China Preventive Medicine, 2024, 25(6):812-819. (in Chinese)

[4]
ZHONG Y, LEI Y H, JIANG S, et al. Advances in understanding the role of gut microbiota in fat deposition and lipid metabolism[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):152.

[5]
陆江, 朱道仙, 刘莉, 等. 不同蛋白质水平饲粮对肥胖犬体况、血清生化指标、粪便短链脂肪酸浓度及肠道菌群结构的影响[J]. 动物营养学报, 2021, 33(4):2224-2234.

LU J, ZHU D X, LIU L, et al. Effects of diets with different protein levels on body condition,serum biochemical indexes,short chain fatty acid concentrations in feces and gut microbiota structure of obese dogs[J]. Chinese Journal of Animal Nutrition, 2021, 33(4):2224-2234. (in Chinese)

[6]
LI K Q, XIAO X Y, LI Y L, et al. Insights into the interplay between gut microbiota and lipid metabolism in the obesity management of canines and felines[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):114.

[7]
张萌, 陈着, 何瑞瑞, 等. 荷叶及其有效成分治疗代谢综合征研究进展[J]. 辽宁中医药大学学报, 2025, 27(1):115-120.

ZHANG M, CHEN Z, HE R R, et al. Research progress of Heye (Nelumbinis folium) and its active components in the treatment of metabolic syndrome[J]. Journal of Liaoning University of Traditional Chinese Medicine, 2025, 27(1):115-120. (in Chinese)

[8]
REN X S, CHEN H, WANG H B, et al. Advances in the pharmacological effects and mechanisms of Nelumbo nucifera Gaertn. extract nuciferine[J]. Journal of Ethnopharmacology, 2024, 331:118262.

[9]
LU J, XU Y T, QIAN X L, et al.Preparation, pharmacokinetics and anti-obesity effects on dogs of nuciferine liposomes[J]. Veterinary Medicine and Science, 2024, 10(5):e70017.

[10]
卢炜, 刘超, 卢劲晔, 等. 荷叶碱改善高脂饮食诱导比格犬肥胖的试验研究[J]. 畜牧与兽医, 2023, 55(12):122-128.

LU W, LIU C, LU J Y, et al. Experimental study on the improvement of obesity induced by high-fat diet with nuciferine in beagles[J]. Animal Husbandry & Veterinary Medicine, 2023, 55(12):122-128. (in Chinese)

[11]
LAWLEY B, TANNOCK G W. Analysis of 16S rRNA gene amplicon sequences using the QIIME software package[M]// SEYMOURG, CULLINANM, HENGN. Oralbiology. New York: Humana Press, 2017:153-163.

[12]
LOZUPONE C, KNIGHT R. UniFrac:a new phylogenetic method for comparing microbial communities[J]. Applied and Environmental Microbiology, 2005, 71(12):8228-8235.

[13]
MATSEN F A, EVANS S N. Edge principal components and squash clustering:using the special structure of phylogenetic placement data for sample comparison[J]. PLoS One, 2013, 8(3):e56859.

[14]
DOUGLAS G M, BEIKO R G, LANGILLE M G I. Predicting the functional potential of the microbiome from marker genes using PICRUSt[J]. Methods in Molecular Biology, 2018, 1849:169-177.

[15]
GRANT R W, VESTER BOLER B M, RIDGE T K, et al. Adipose tissue transcriptome changes during obesity development in female dogs[J]. Physiological Genomics, 2011, 43(6):295-307.

[16]
LI Y, RAHMAN S U, HUANG Y Y, et al. Green tea polyphenols decrease weight gain,ameliorate alteration of gut microbiota,and mitigate intestinal inflammation in canines with high-fat-diet-induced obesity[J]. The Journal of Nutritional Biochemistry, 2020, 78:108324.

[17]
路晓杰. 冠突散囊菌对肥胖犬的防治效果及机制研究[D]. 博士学位论文. 长春: 吉林大学, 2021.

LU X J. The anti-obesity effect and mechanism of Eurotium cristatum on dogs[D]. Ph.D.Thesis. Changchun: Jilin University, 2021. (in Chinese)

[18]
MOINARD A, PAYEN C, OUGUERRAM K, et al. Effects of high-fat diet at two energetic levels on fecal microbiota,colonic barrier,and metabolic parameters in dogs[J]. Frontiers in Veterinary Science, 2020, 7:566282.

[19]
WREN J A, GOSSELLIN J, SUNDERLAND S J, et al. Dirlotapide:a review of its properties and role in the management of obesity in dogs[J]. Journal of Veterinary Pharmacology and Therapeutics, 2007,30 (Suppl.1):11-16.

[20]
DICKERSON S M, TIMLIN C L, MCCRACKEN F B, et al. Bifidobacterium animalis subspecies lactis CECT 8145 affects markers of metabolic health in dogs during weight gain and weight loss[J]. Animals, 2026, 16(2):259.

[21]
DOWLING P M. Drugs that affect appetite in monogastric animals[EB/OL].(2023-05-03)[2026-06-17]. https://www.merckvetmanual.com/pharmacology/systemic-pharmacotherapeutics-of-the-digestive-system/drugs-that-affect-appetite-in-monogastric-animals.

[22]
KLONOFF D C. Dirlotapide a U.S. food and drug administration-approved first-in-class obesity drug for dogs:will humans be next?[J]. Journal of Diabetes Science and Technology, 2007, 1(3):314-316.

[23]
BERVOETS L, VAN HOORENBEECK K, KORTLEVEN I, et al. Differences in gut microbiota composition between obese and lean children:a cross-sectional study[J]. Gut Pathogens, 2013, 5(1):10.

[24]
刘嘉平, 王博, 张晓伟, 等. 绞股蓝皂苷饮食干预小鼠肥胖及肠道菌群研究[J]. 中国食品学报, 2022, 22(7):88-96.

LIU J P, WANG B, ZHANG X W, et al. Effect of gypenosides diet intervention on obesity control and gut microbiota regulation in mice[J]. Journal of Chinese Institute of Food Science and Technology, 2022, 22(7):88-96. (in Chinese)

[25]
HUANG Y M, CAO J L, ZHU M P, et al. Bacteroides fragilis aggravates high-fat diet-induced non-alcoholic fatty liver disease by regulating lipid metabolism and remodeling gut microbiota[J]. Microbiology Spectrum, 2024, 12(4):e03393-23.

[26]
ZHU X X, ZHAO C Y, MENG X Y, et al. Bacteroides uniformis ameliorates carbohydrate and lipid metabolism disorders in diabetic mice by regulating bile acid metabolism via the gut-liver axis[J]. Pharmaceuticals, 2024, 17(8):1015.

[27]
ZHOU J Y, LIU L, WU P Y, et al. Fusobacterium nucleatum accelerates atherosclerosis via macrophage-driven aberrant proinflammatory response and lipid metabolism[J]. Frontiers in Microbiology, 2022, 13:798685.

[28]
郭艳东, 洪汝丹, 汪艳蛟, 等. 培哚普利对肥胖大鼠肠道微生态的影响[J]. 昆明医科大学学报, 2022, 43(11):9-16.

GUO Y D, HONG R D, WANG Y J, et al. Effects of perindopril on intestinal microecology in obese rats[J]. Journal of Kunming Medical University, 2022, 43(11):9-16. (in Chinese)

[29]
董汉琦. 陈皮对犬肠道菌群及脂质代谢调控的研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2020.

DONG H Q. Study of Chenpi on the regulation of intestinal flora and lipid metabolism in dogs[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2020. (in Chinese)

[30]
ZHU S N, XU W J, LIU J, et al. Preparation of microgel co-loaded with nuciferine and epigallocatechin-3-gallate for the regulation of lipid metabolism[J]. Frontiers in Nutrition, 2022, 9:1069797.

[31]
SUN J Y, FAN J M, LI T T, et al. Nuciferine protects against high-fat diet-induced hepatic steatosis via modulation of gut microbiota and bile acid metabolism in rats[J]. Journal of Agricultural and Food Chemistry, 2022, 70(38):12014-12028.

[32]
WANG Y, YAO W F, LI B, et al. Nuciferine modulates the gut microbiota and prevents obesity in high-fat diet-fed rats[J]. Experimental & Molecular Medicine, 2020, 52(12):1959-1975.

[33]
FUNAI K, LODHI I J, SPEARS L D, et al. Skeletal muscle phospholipid metabolism regulates insulin sensitivity and contractile function[J]. Diabetes, 2016, 65(2):358-370.

[34]
ZHU Y, WEI Y L, KARRAS I, et al. Modulation of the gut microbiota and lipidomic profiles by black chokeberry (Aronia melanocarpa L.) polyphenols via the glycerophospholipid metabolism signaling pathway[J]. Frontiers in Nutrition, 2022, 9:913729.

[35]
FAN R, KIM J, YOU M, et al. α-linolenic acid-enriched butter attenuated high fat diet-induced insulin resistance and inflammation by promoting bioconversion of n-3 PUFA and subsequent oxylipin formation[J]. The Journal of Nutritional Biochemistry, 2020, 76:108285.

[36]
LONG X Y, ZENG X F, TAN F, et al. Lactobacillus plantarum KFY04 prevents obesity in mice through the PPAR pathway and alleviates oxidative damage and inflammation[J]. Food & Function, 2020, 11(6):5460-5472.

[37]
HENNEKE L, SCHLICHT K, ANDREANI N A, et al. A dietary carbohydrate-gut Parasutterella-human fatty acid biosynthesis metabolic axis in obesity and type 2 diabetes[J]. Gut Microbes, 2022, 14(1):2057778.

[38]
WEN Y H, LUO Y D, QIU H, et al. Gut microbiota affects obesity susceptibility in mice through gut metabolites[J]. Frontiers in Microbiology, 2024, 15:1343511.

[39]
沈利叶, 潘永明, 徐雁云, 等. 高脂高糖饮食诱导五指山小型猪动脉粥样硬化模型肠道菌群的变化[J]. 中国实验动物学报, 2022, 30(3):299-308.

SHEN L Y, PAN Y M, XU Y Y, et al. Changes in intestinal flora in a Wuzhishan mini pig atherosclerosis model induced by high-fat and high-sugar diet[J]. Acta Laboratorium Animalis Scientia Sinica, 2022, 30(3):299-308. (in Chinese)

Outlines

/