RESEARCH PAPER

Single-Cell RNA Sequencing Revealed Cellular Heterogeneity in Mammary Tissue of Dairy Cows with Mastitis

  • ZHANG Jiayi , 1 ,
  • LIU Zixin 1, 2 ,
  • ZHOU Chuanshe , 1, 2, *
Expand
  • 1 National Engineering Laboratory for Pollution Control and Resource Utilization Technology in Livestock and Poultry Breeding, Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, State Key Laboratory of Forage Breeding-by-Design and Utilization, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 Yuelushan Laboratory, Changsha 410125, China
*professor, E-mail:

Received date: 2025-12-11

  Online published: 2026-08-13

Abstract

In order to elucidate the cellular heterogeneity, functional remodeling and intercellular communication dynamics in mammary tissue of dairy cows during the development of mastitis, this study investigated 39 Holstein dairy cows using a comprehensive approach including California mastitis test (CMT), pathogenic bacterial colony colorimetric detection, determination of inflammatory factor expression, histopathological observation and single-cell RNA sequencing (scRNA-seq) technology, and systematically analyzed the differential characteristics of healthy and inflammatory mammary tissue. The results showed as follows: 1) the majority of somatic cell counts in mammary gland ranged from negative to weakly positive, with most cases exhibiting mild to moderate inflammation; the identified predominant pathogens were Escherichia coli, coagulase-negative Staphylococci, Streptococcus agalactiae, and Staphylococcus aureus, with mixed infections accounting for 71.79% of cases. 2) Compared with the healthy group (Norm group), the mRNA relative expression levels of interleukin-6 (IL-6), interleukin-8 (IL-8), interleukin-1β (IL-1β), and tumor necrosis factor-α (TNF-α) in mammary gland in the subclinical mastitis group (SCM group) and the clinical mastitis group (CM group) were significantly increased (P<0.05), which were significantly higher in the CM group compared with the SCM group (P<0.05). 3) Histopathological analysis revealed extensive swelling, hemorrhagic foci, and marked expansion of alveolar lumens in mammary tissue in the CM group, accompanied by pronounced inflammatory infiltration. In contrast, the SCM group showed only mild local congestion with scattered inflammatory cells. 4) scRNA-seq analysis of mammary tissue identified 17 distinct cell clusters, comprising five major cell types: epithelial cells, endothelial cells, fibroblasts, myeloid cells, and lymphocytes. Differentially expressed genes (DEGs) and functional enrichment analysis revealed that upregulated genes in epithelial cells were mainly enriched in mitogen activated protein kinase (MAPK) and peroxisome proliferator-activated receptor (PPAR) signaling pathways, while endothelial cells were associated with tight junction and endocytosis pathways. Fibroblasts displayed high activity in inflammatory and apoptotic signaling pathways. Myeloid cells and lymphocytes were enriched in immune response and phagocytosis-related pathways. Further subclustering analysis found that epithelial subpopulations showed differential regulation in lipid metabolism and cell division, while myeloid subpopulations differed in immune response and autophagy-related regulation. Lymphoid and endothelial subpopulations were mainly involved in cell migration and immune responses. Moreover, the intercellular communication analysis demonstrated a significant increase in both the number and intensity of ligand-receptor interactions in inflamed mammary tissue. Notably, the enrichment of NOTCH signaling pathway in endothelial cells suggested their potential role in inflammation, and the cell adhesion molecule (CADM) pathway in epithelial cells and the urokinase-type plasminogen activator (PLAU) pathway in myeloid cells were also markedly activated. This study provides novel insights into the cellular heterogeneity and molecular mechanisms underlying bovine mastitis, offering a theoretical foundation for more accurate diagnosis and targeted therapeutic strategies.

Cite this article

ZHANG Jiayi , LIU Zixin , ZHOU Chuanshe . Single-Cell RNA Sequencing Revealed Cellular Heterogeneity in Mammary Tissue of Dairy Cows with Mastitis[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 6115 -6132 . DOI: 10.12418/CJAN2026.490

随着畜牧业的快速发展,奶牛生产性能成为养殖行业关注的重点。乳腺组织在奶牛乳汁分泌过程中起着至关重要的作用,而乳腺组织的健康状况直接影响奶牛的乳汁产量与质量[1]。乳腺炎是奶牛常见的乳腺疾病之一,不仅影响奶牛的经济效益,还可能对乳制品的安全性产生潜在风险[2]。研究表明,奶牛乳腺炎主要由乳腺上皮屏障破坏、免疫细胞异常激活、成纤维细胞功能紊乱和炎症因子大量释放所驱动。在持续的致病菌刺激下,乳腺上皮细胞可能会发生功能异常,在此期间它们失去正常分泌功能和细胞间连接完整性,同时获得促炎表型,炎症信号传递能力增强,进而加剧乳腺组织损伤和炎性浸润[3]。这些改变破坏了乳腺组织的结构稳定性,并有助于组织纤维化及乳汁分泌功能下降。同时,成纤维细胞被异常激活并增殖,分泌大量细胞外基质(ECM)成分和促炎介质,加剧组织重塑和炎症反应,促进病变组织的僵硬和功能衰退[4]。这些病理过程共同导致不可逆的乳腺组织损伤和乳腺炎慢性化。此外,局部免疫微环境中巨噬细胞、淋巴细胞等免疫细胞的失衡激活在协调炎症放大和组织修复紊乱方面起着关键作用[5]。然而,大多数现有研究都集中在特定的信号通路上,如丝裂原活化蛋白激酶(MAPK)、核因子-κB(NF-κB)和磷脂酰肌醇3-激酶(PI3K)-蛋白激酶B(Akt),或单一细胞类型的功能分析,缺乏对患炎乳腺组织中发生的多细胞相互作用和动态功能重塑事件的全面了解。
针对这一研究空白,本研究通过单细胞RNA测序(scRNA-seq)技术,旨在揭示患乳腺炎牛乳腺组织中细胞异质性的多维度特征,特别是不同细胞群体间的相互作用及其功能动态。本研究重点关注了乳腺上皮细胞、内皮细胞和成纤维细胞在炎症反应中的角色,明确了它们如何通过分子机制调控组织修复和免疫反应。通过这一方法,本研究能够全面分析乳腺炎组织的细胞异质性,旨在为奶牛的健康管理和乳制品的安全性提供参考。

1 材料与方法

1.1 动物分组和处理

本试验所用39头荷斯坦奶牛均来源于河北廊坊某屠宰场,受屠宰场实际生产场景及信息记录条件限制,无法精准获取奶牛的出生日期、泌乳天数等详细个体信息;采样过程中结合奶牛体况、乳房发育状态、牙齿磨损程度等外观特征进行经验判定,筛选出年龄相仿(成年经产牛,外观判定3~5岁)、胎次均为2~4胎的健康及患炎奶牛,且所有奶牛均处于泌乳期。屠宰奶牛遵循相关的管理条例和操作标准。现场采集2管牛乳置于50 mL离心管,将其分装至2管15 mL离心管。剥离乳腺组织并剪出6块0.5 cm3组织样品,2块泡入50 mL多聚甲醛中,剩余4块被锡纸包裹后放入液氮中速冻。

1.2 乳样致病菌和体细胞数量(SCC)检测

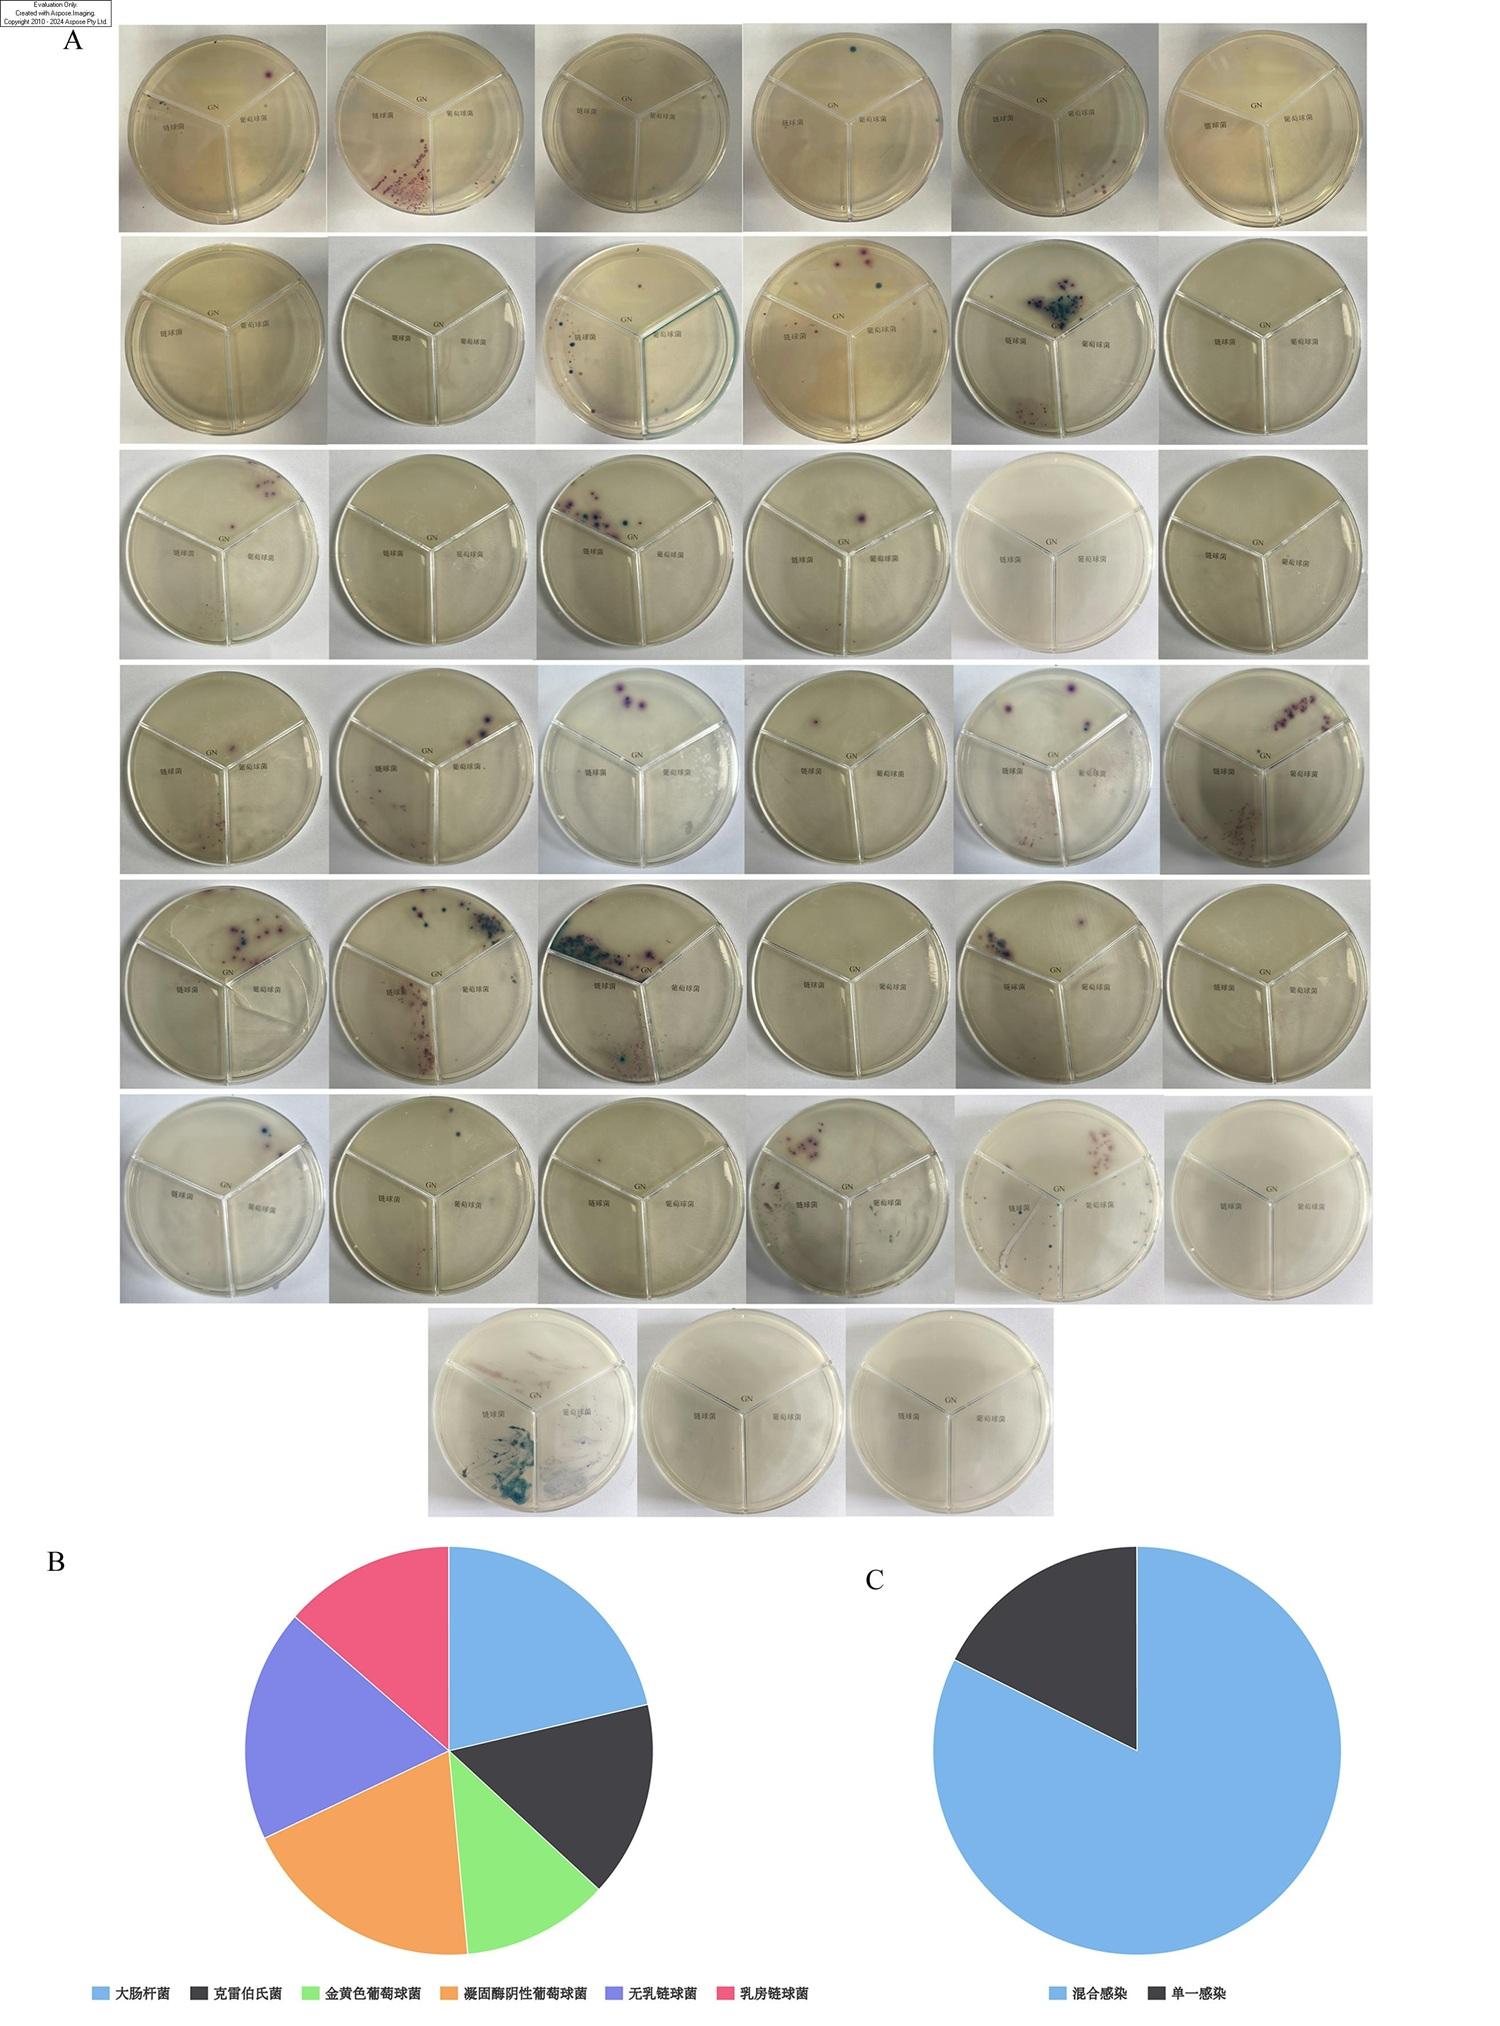
采用一次性无菌接种环(10 μL)蘸取1环乳样,划线接种于乳腺炎致病菌显色检测三分皿的各个区域,培养24 h后,观察菌落颜色。三分皿由链球菌(a区)、葡萄球菌(b区)以及革兰氏阴性菌(c区)的选择性培养基组成。判定标准为:a区,无乳链球菌为紫红色菌落,光滑,凸起;乳房链球菌为深蓝色菌落,光滑,凸起。b区,金黄色葡萄球菌为淡红色、紫红色菌落;凝固酶阴性葡萄球菌为蓝绿色或无色菌落。c区,大肠杆菌为紫红色菌落;克雷伯氏菌、肠杆菌和柠檬酸杆菌为深蓝色菌落;变形杆菌为棕色晕环菌落;假单胞菌为奶油状、半透明菌落,有绿色色素沉淀;白色念珠菌(真菌)为白色菌落,不透明,菌落小。
取2 mL乳样,采用加州乳腺炎检测(CMT)法进行体细胞检测。每只奶牛乳样做3个平行样本检测,判定标准参考《荷斯坦牛生产技术规范 第17部分:乳房炎防治》(DB61/T 367.17—2022)。依据致病菌菌落显色及CMT法检测结果,设置健康组(Norm组)、亚临床乳腺炎组(SCM组)和临床乳腺炎组(CM组)3组。

1.3 乳腺炎症因子表达测定

采用TRIzol法提取乳腺组织样品中的总RNA,并用超微量分光光度计(NanoDrop,Thermo Fisher Scientific,美国)测定RNA浓度和纯度,随后用含gDNA去除剂的StarScript Ⅲ一管化去基因组反转录预混液(Genstar,北京康润诚业生物科技有限公司)将RNA反转录合成cDNA。采用StarScript Ⅲ一步法qPCR试剂盒(Genstar,北京康润诚业生物科技有限公司)和实时荧光定量PCR系统(LightCycler 480,Roche,瑞士)检测乳腺组织中白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)mRNA相对表达量[以β-肌动蛋白(β-actin)作为内参基因]。实时荧光定量PCR所用引物序列见表1,由北京擎科生物科技股份有限公司合成。每个样本设置3个重复,采用2-ΔΔCt法计算各目的基因mRNA相对表达量。
表1 实时荧光定量PCR引物序列

Table 1 Primer sequences for real-time fluorescence quantitative PCR

基因
Genes
登录号
Accession number
引物序列
Primer sequences (5'—3')
白细胞介素-6 IL-6 NM_173923.2 F: GGAGGAAAAGGACGGATGCT
R: AGGTCAGTGTTTGTGGCTGG
白细胞介素-8 IL-8 NM_173925.2 F: AATGGAAACGAGGTCTGCCT
R: TGGATCTTGCTTCTCAGCTCT
白细胞介素-1β IL-1β NM_174093.1 F: GCATCCAACACCTGGACCTC
R: CATGTGCGTAGGCACTGTTC
肿瘤坏死因子-α TNF-α NM_173966.3 F: CCTCCATCAACAGCCCTCTG
R: TGGTAGGAGACTGCAATGCG
β-肌动蛋白 β-actin NM_173979.3 F: GCGGCATTCACGAAACTACC
R: CGGACTCATCGTACTCCTGC

1.4 乳腺组织病理学观察

对分离的乳腺迅速拍照留存,以备进行观察比对。严格按照石蜡切片的制作流程对固定好的乳腺组织进行石蜡切片制作。对制作好的切片进行苏木精-伊红(HE)染色,中性树脂封片。在显微镜下观察各组乳腺组织的病理学变化。

1.5 单细胞测序样本筛选标准

本研究根据奶牛乳腺组织红肿程度、渗出情况及腺泡破坏程度,结合临床观察,构建了自定义的奶牛乳腺炎评分标准(表2)。采用该评分标准分别筛选3头健康对照(Norm组,3头评分均为1分)和3头患乳腺炎(Mas组,2头评分为3分、1头评分为4分)奶牛的乳腺组织进行单细胞测序,确保组织状态具有代表性。
表2 奶牛乳腺炎评分标准

Table 2 Scoring criteria for mastitis in dairy cows

分值
Scores
乳样致病菌检测
Detection of pathogenic
bacteria in milk
samples
体细胞数量
SCC/
(×103个/mL)
乳腺中炎症
因子水平
Inflammatory
factor levels in
mammary
gland
乳腺组织
肉眼观察
Visual observation of
mammary tissue
乳腺组织
病理学观察
Histopathological
observation of
mammary tissue
1分(健康)
1 point (health)
3个培养基区域均无
菌落生长,未检出
致病菌及真菌
<200 炎症因子水平处于
生理基础水平,
无显著升高
乳腺组织质地柔软,
呈淡粉色,无肿胀、
充血、坏死灶
腺泡完整,
无炎性浸润
2分(轻微炎症)
2 points (mild
inflammation)
仅单一选择性培养基
区域出现少量条件
致病菌菌落
200~500 炎症因子水平较健
康组升高1~2倍
乳腺局部轻微充血,
质地稍硬,无明
显肿胀
少量炎性
细胞浸润
3分(中度炎症)
3 points (moderate
inflammation)
1~2个培养基区域
检出致病性
致病菌菌落
500~800 炎症因子水平较健
康组升高2~5倍
乳腺明显充血、
肿胀,质地硬
大量炎性细胞浸润,
腺泡腔隙扩大
4分(重度炎症)
4 points (severe
inflammation)
3个培养基区域中≥
2个区域检出致病性
致病菌菌落
800~5 000 炎症因子水平较
健康组升高5~10倍
乳腺重度肿胀、
变硬,呈暗红色
腺泡大量破坏,
结缔组织增生
5分(极重度炎症)
5 points (extremely
severe inflammation)
3个选择性培养基
区域均检出致病性
致病菌菌落,且伴
大量白色念珠菌、
真菌菌落
≥5 000 炎症因子水平较健康
组升高>10倍
乳腺组织坏死、
溃烂,坏死灶直径≥
1 cm,乳腺与周围
组织黏连
脓肿形成,
小叶结构
完全破坏

1.6 数据分析及处理方法

试验数据统计分析采用SPSS 26软件进行,采用单因素方差分析(one-way ANOVA)来判定Norm组、SCM组和CM组3组之间的差异显著性,并采用Duncan氏法进行多重比较检验。结果数据采用“平均值±标准误”形式表示,P<0.05为差异显著。

1.7 scRNA-seq

将液氮中保存的乳腺组织用于scRNA-seq,采用酶消化法制备单细胞悬液,细胞悬液通过过滤器去除细胞团块,并使用台盼蓝排除死细胞。随后,通过流式细胞仪对单细胞进行筛选,确保样本中细胞活性较高,且无污染物。解离最终得到的细胞悬液加载到10x Genomics Chromium系统中,根据建库试剂盒(10x Genomics Chromium Single-Cell 3' Kit,V3)操作说明书进行细胞捕获(目标捕获细胞数为5 000个),并进行cDNA扩增和文库构建。采用NovaSeq 6000测序平台进行150 bp双端多重测序,测序深度要求每个细胞20 000 reads。采用R包(3.5.1)和Seurat包(3.1.5)进行数据的过滤和归一化,以及降维、无监督聚类、注释和可视化。建库及测序工作均由广州基迪奥生物科技有限公司完成。

1.7.1 差异表达基因(DEGs)的检测

为了获得每个簇的DEGs列表,仅考虑在该簇中表达超过30%的基因,并使用所有其他细胞中的表达作为背景。对于统计检验,使用在Seurat包中默认Wilcoxon检验。DEGs定义为与背景相比|log2差异倍数|超过0.2且q值[错误发现率(FDR)]小于0.05的基因。

1.7.2 不同细胞类型的功能富集分析

采用R包clusterProfiler进行基因本体(GO)生物过程和京都基因与基因组百科全书(KEGG)功能富集分析。

1.7.3 拟时序分析

采用R包Monocle2对细胞进行拟时序分析。

1.7.4 细胞间通讯分析

利用CellChat软件(1.1.3)分析潜在的细胞间通信,并采用circlize(0.4.10)可视化细胞-细胞网络。

1.7.5 机制模式图绘制

scRNA-seq的配体-受体互作与信号通路富集分析结果,采用BioRender在线绘图软件(https://biorender.com)构建患乳腺炎奶牛乳腺组织细胞调控机制模式图。

2 结果与分析

2.1 牛乳中SCC和乳腺炎致病菌概况

表3可知,将收集的39份乳样进行CMT法检测,结果表明SCC在0~200 000个/mL的乳样占比为12.82%,SCC在200 000~500 000个/mL的乳样占比为64.10%(最高),SCC在500 000~800 000个/mL的乳样占比为17.95%,SCC在800 000~5 000 000个/mL和大于5 000 000个/mL的乳样均只出现1例(占比均为2.56%)。
表3 CMT法检测结果

Table 3 Detection results by CMT method

判定结果
Judgement results
份数
Samples
占比
Proportion/%
阴性 Negative (-) 5 12.82
可疑 Suspected (±) 25 64.10
弱阳性 Weakly positive (+) 7 17.95
阳性 Positive (++) 1 2.56
强阳性 Strongly positive (+++) 1 2.56
图1所示,将收集到的39份牛乳分别接种至乳腺炎致病菌显色检测皿,结果发现大肠杆菌占比最高为56.41%,凝固酶阴性葡萄球菌占比为51.28%,无乳链球菌占比为48.72%,金黄色葡萄球菌占比为30.77%;未感染牛乳占比为12.83%;同时,多数奶牛乳腺炎感染属于混合感染,占比高达71.79%。
图1 乳样致病菌检测结果

A:乳腺炎致病菌显色检测皿实拍图;B:乳样中致病菌菌种占比;C:感染模式占比。GN表示革兰氏阴性菌。

Fig.1 Detection results of pathogenic bacteria in milk samples

A: actual photos of color-changing detection dishes for mastitis pathogenic bacteria; B: proportion of pathogenic bacteria species in milk samples; C: proportion of infection patterns. GN stood for Gram-negative bacteria.

2.2 乳腺组织病理学观察

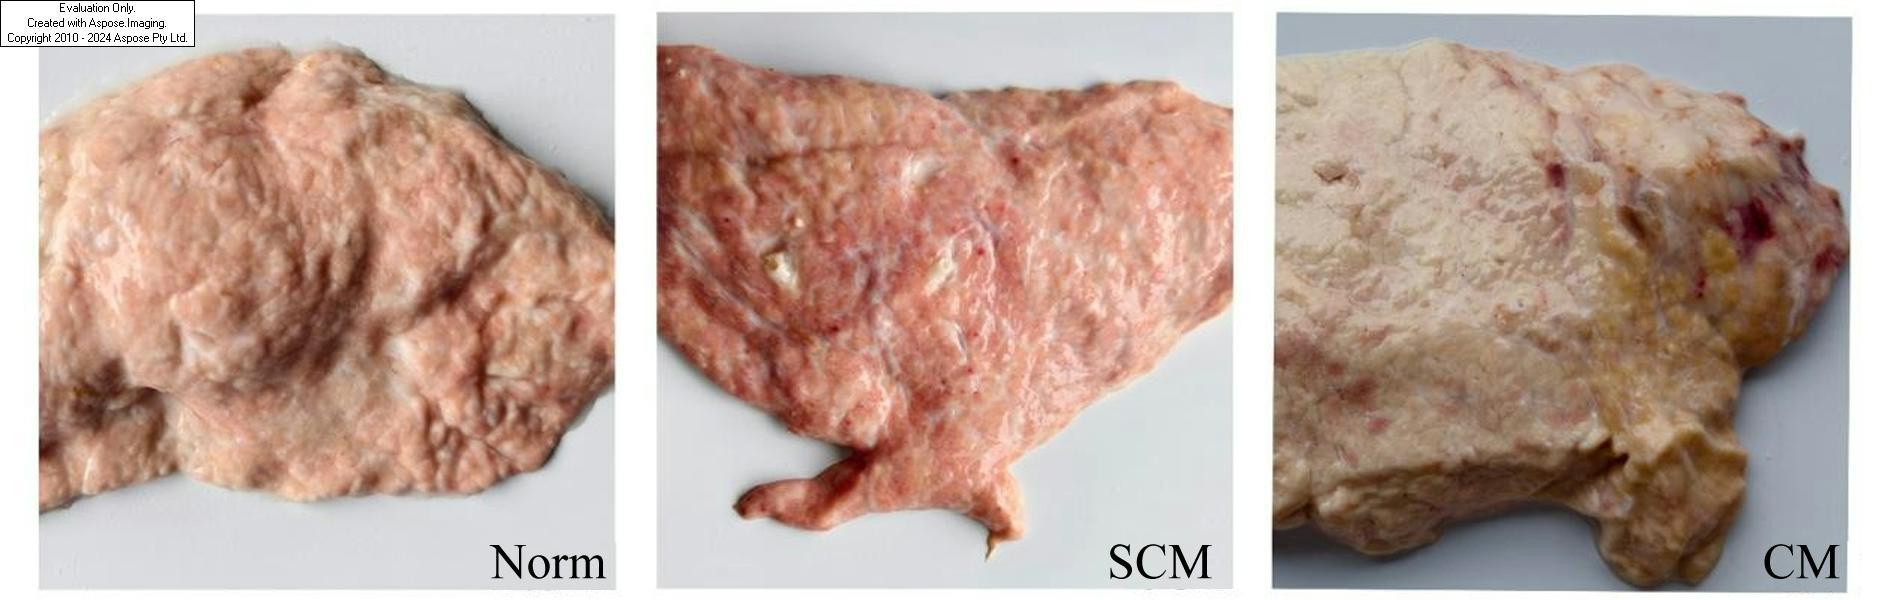
图2所示,Norm组乳腺组织呈乳白色分叶状,表面光滑;SCM组乳腺组织观察到少量出血点;CM组乳腺组织出现红肿并观察到广泛出血点,局部出现破溃流脓,部分质地变硬。
图2 不同患炎程度乳腺外观

Norm:健康组 health group;SCM:亚临床乳腺炎组 subclinical mastitis group;CM:临床乳腺炎组 clinical mastitis group。图3图4同 the same as Fig.3 and Fig.4

Fig.2 Appearance of mammary gland with different degrees of mastitis severity

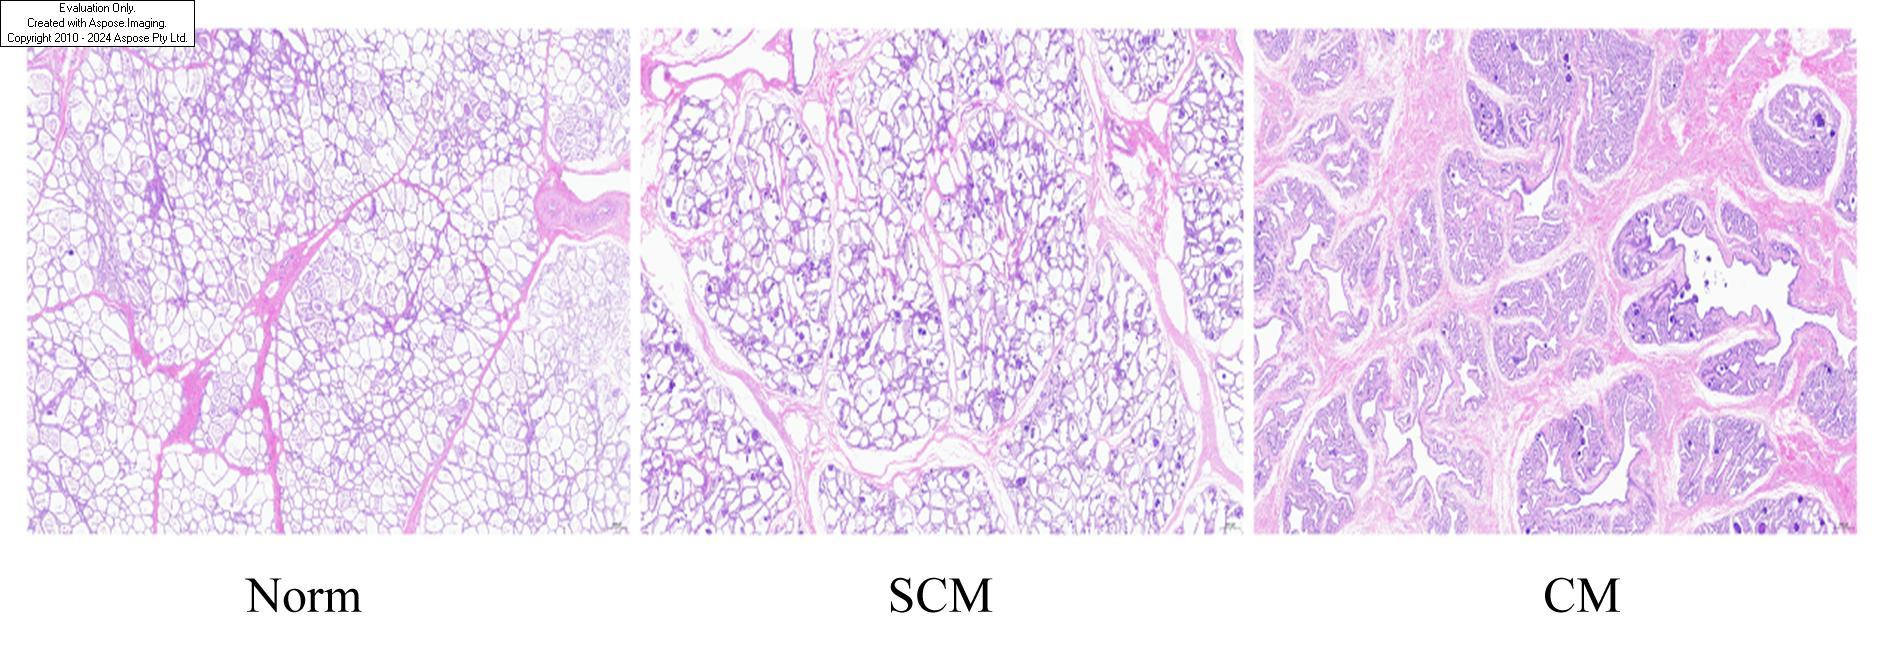
图3所示,HE染色结果显示,Norm组乳腺组织结构清晰,腺泡形态规则、排列整齐,小叶间纤维结缔组织分布均匀,无炎性细胞浸润;SCM组乳腺组织腺泡分布略不均匀,部分腺泡腔隙轻度扩大,小叶间间质可见少量散在的炎性细胞(主要为中性粒细胞、巨噬细胞);CM组乳腺组织腺泡排列紊乱,腔隙显著扩大,部分腺泡结构松散,小叶间及腺泡周围可见聚集性炎性细胞浸润。
图3 不同患炎程度乳腺组织HE染色结果

Fig.3 HE staining results of mammary tissue with different degrees of mastitis severity (200×)

2.3 乳腺炎症因子mRNA相对表达量

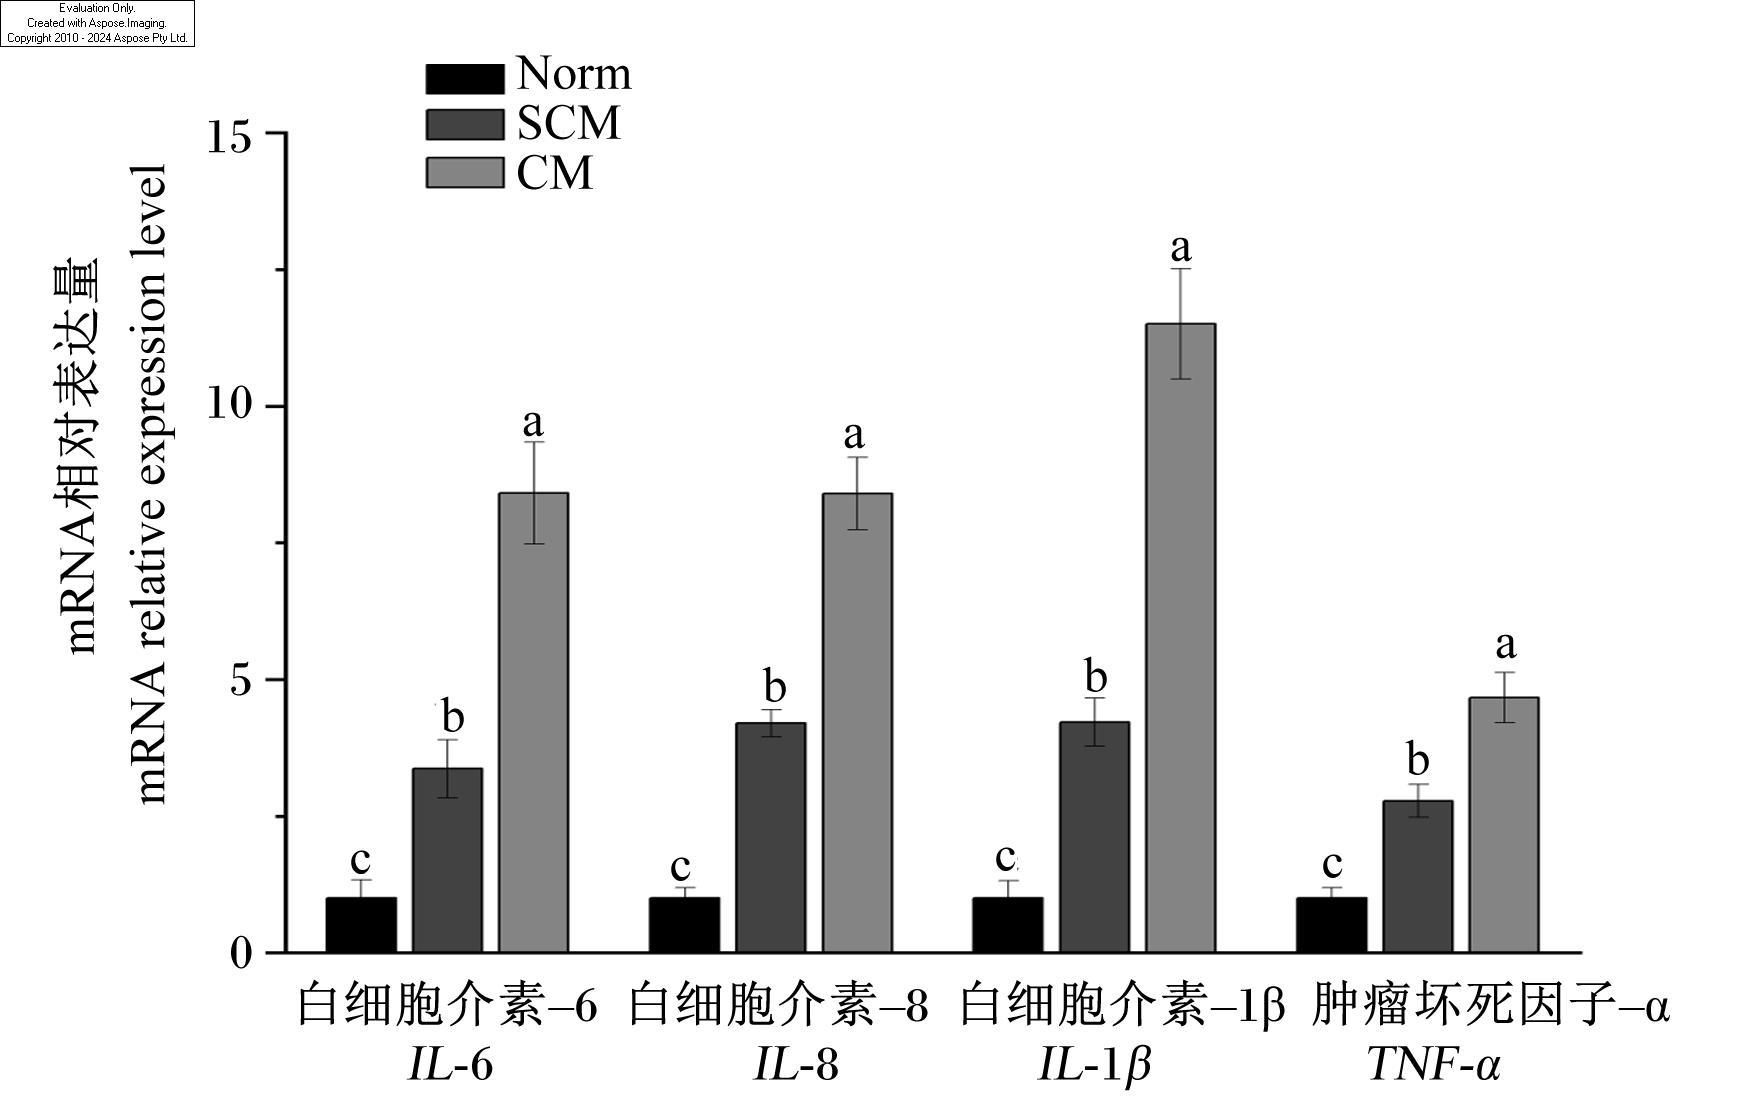
图4所示,与Norm组比较,SCM组和CM组乳腺IL-6、IL-8、IL-1βTNF-α mRNA相对表达量均显著提高(P<0.05);与SCM组相比,CM组乳腺IL-6、IL-8、IL-1βTNF-α mRNA相对表达量均显著提高(P<0.05)。
图4 乳腺炎症因子mRNA相对表达量

数据柱标记不同字母表示差异显著(P<0.05)。

Fig.4 mRNA relative expression levels of inflammatory factors in mammary gland Data columns marked with different letters indicated significant differences (P<0.05).

2.4 乳腺单细胞转录图谱构建

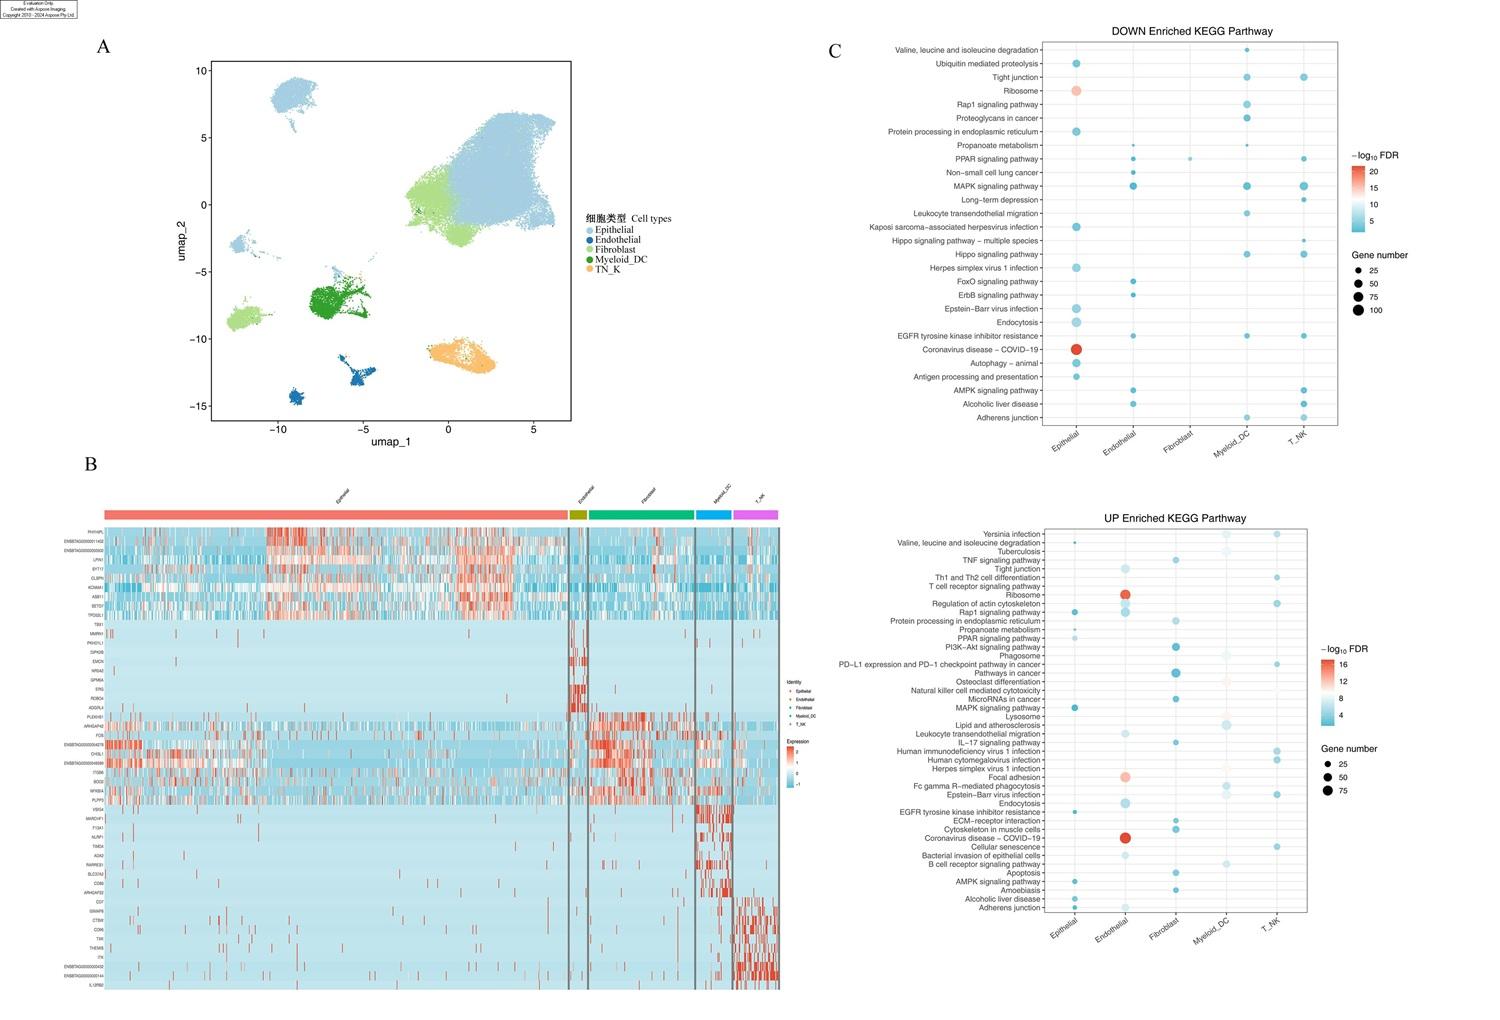
经单细胞高通量测序、降维和聚类分析,从所有样本中最终获得17个细胞簇,基于CellMarker数据库及跨物种保守标志基因分析,鉴定出5种构成患乳腺炎奶牛乳腺微环境的体细胞类型(图5-A图5-B),分别为上皮细胞、内皮细胞、成纤维细胞、髓系细胞和淋巴细胞。
图5 奶牛乳腺单细胞转录图谱

A:基于细胞类型注释结果的UMAP可视化图;B:不同类型细胞前5基因;C:不同类型细胞差异表达基因KEGG富集结果。

Epithelial:上皮细胞 epithelial cells;Endothelial:内皮细胞 endothelial cells;Fibroblast:成纤维细胞;Myeloid_DC:髓系细胞 myeloid cells;T_NK:淋巴细胞 lymphocytes;DOWN Enriched KEGG Pathway:下调KEGG富集通路;UP Enriched KEGG Pathway:上调KEGG富集通路;FDR:错误发现率 false discovery rate;Gene number:基因数量;Identity:身份;Expression:表达。下图同 the same as below。

限于篇幅,信号通路和基因名称仅保留英文表示,未进行中文注释,下图同。Due to space limitations, the names of signaling pathways and genes were only represented in English and had not been annotated in Chinese, the same as below.

Fig.5 Single-cell transcriptome map in mammary gland of dairy cows

A:UMAP visualization based on cell type annotation results; B: top 5 genes of different types of cells; C: KEGG enrichment results of DEGs in various types of cells.

图5-C所示,对DEG的KEGG功能富集分析结果显示,上皮细胞上调DEGs主要富集于MAPK信号通路、Ras相关蛋白1(Rap1)信号通路、过氧化物酶体增殖物激活受体(PPAR)信号通路和单磷酸腺苷活化蛋白激酶(AMPK)信号通路等,下调DEGs主要富集于核糖体、内吞作用和自噬等;内皮细胞上调DEGs主要富集于紧密连接、核糖体、肌动蛋白细胞骨架调节、Rap1信号通路、白细胞跨内皮迁移、局灶性黏附和内吞作用等,下调DEGs主要富集于MAPK信号通路、叉头框O(FoxO)信号通路和ErbB信号通路等;成纤维细胞上调DEGs主要富集于肿瘤坏死因子(TNF)信号通路、PI3K-Akt信号通路、白细胞介素-17(IL-17)信号通路、ECM-受体相互作用和凋亡等,下调DEGs主要富集于PPAR信号通路;髓系细胞上调DEGs主要富集于吞噬体、溶酶体、Fcγ受体(FcγR)介导的吞噬作用和B细胞受体信号通路,下调DEGs主要富集于MAPK信号通路、Rap1信号通路、紧密连接和黏附连接等;淋巴细胞上调DEGs主要富集于Th1和Th2细胞分化、T细胞受体信号通路和肌动蛋白细胞骨架调节等,下调DEGs主要富集于紧密连接、MAPK信号通路和AMPK信号通路等。

2.5 乳腺上皮细胞亚群单细胞表征

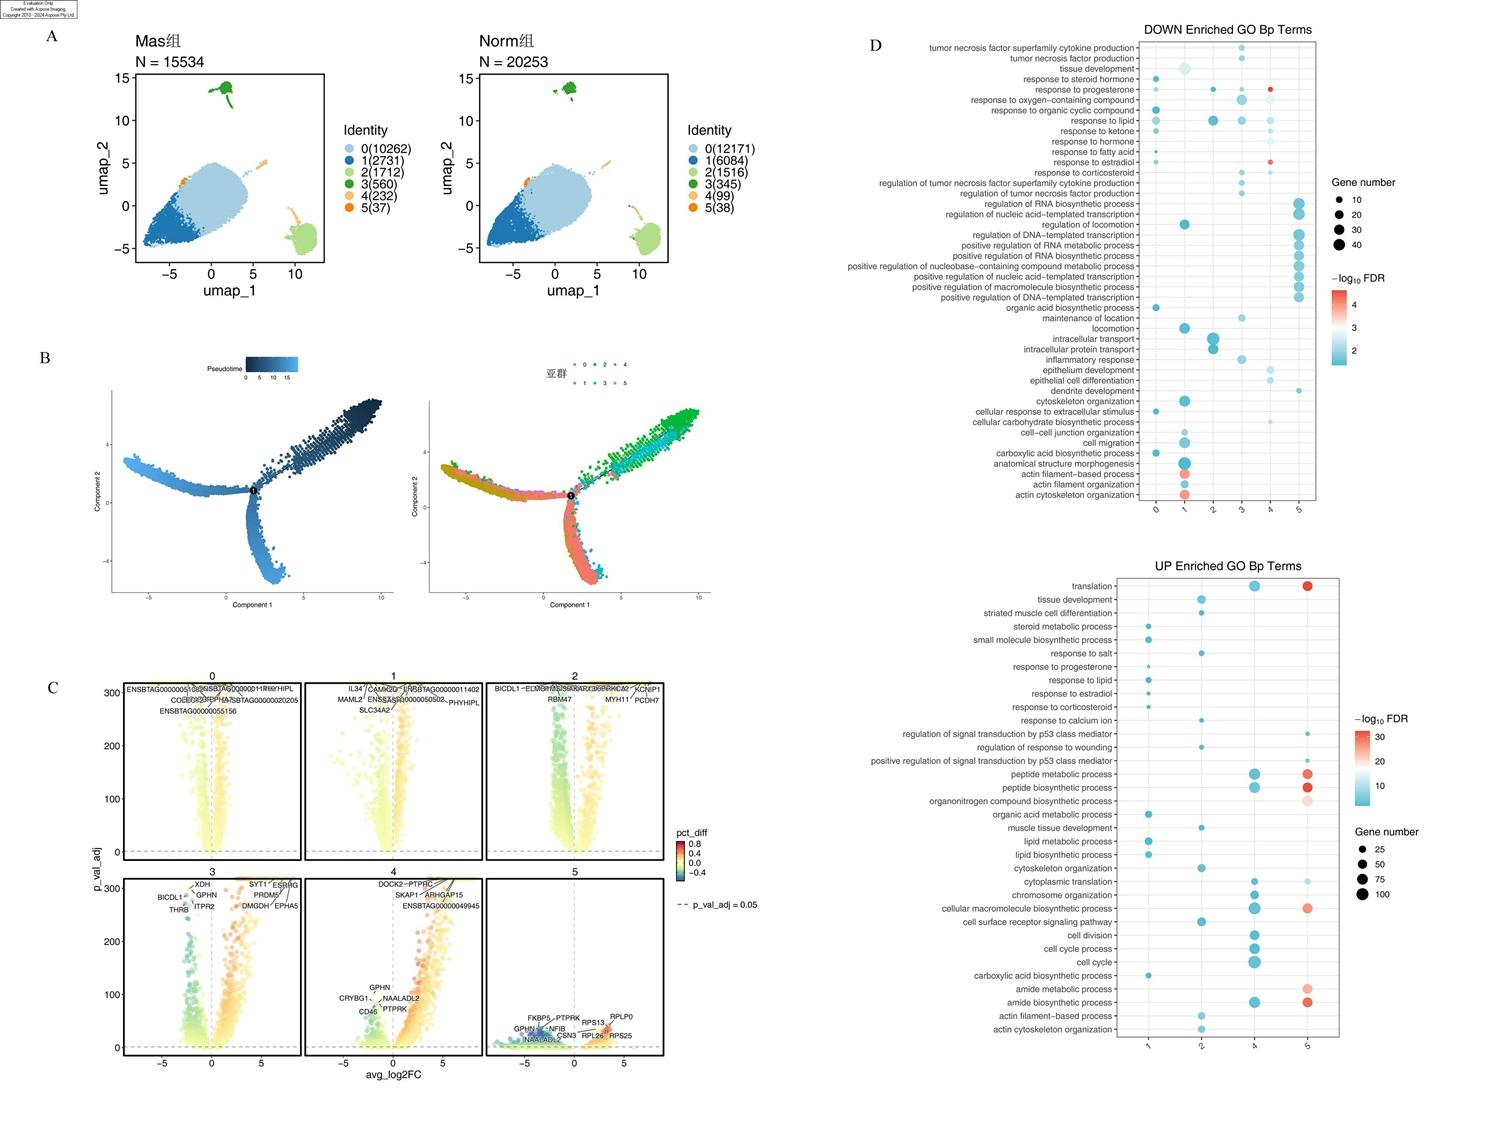
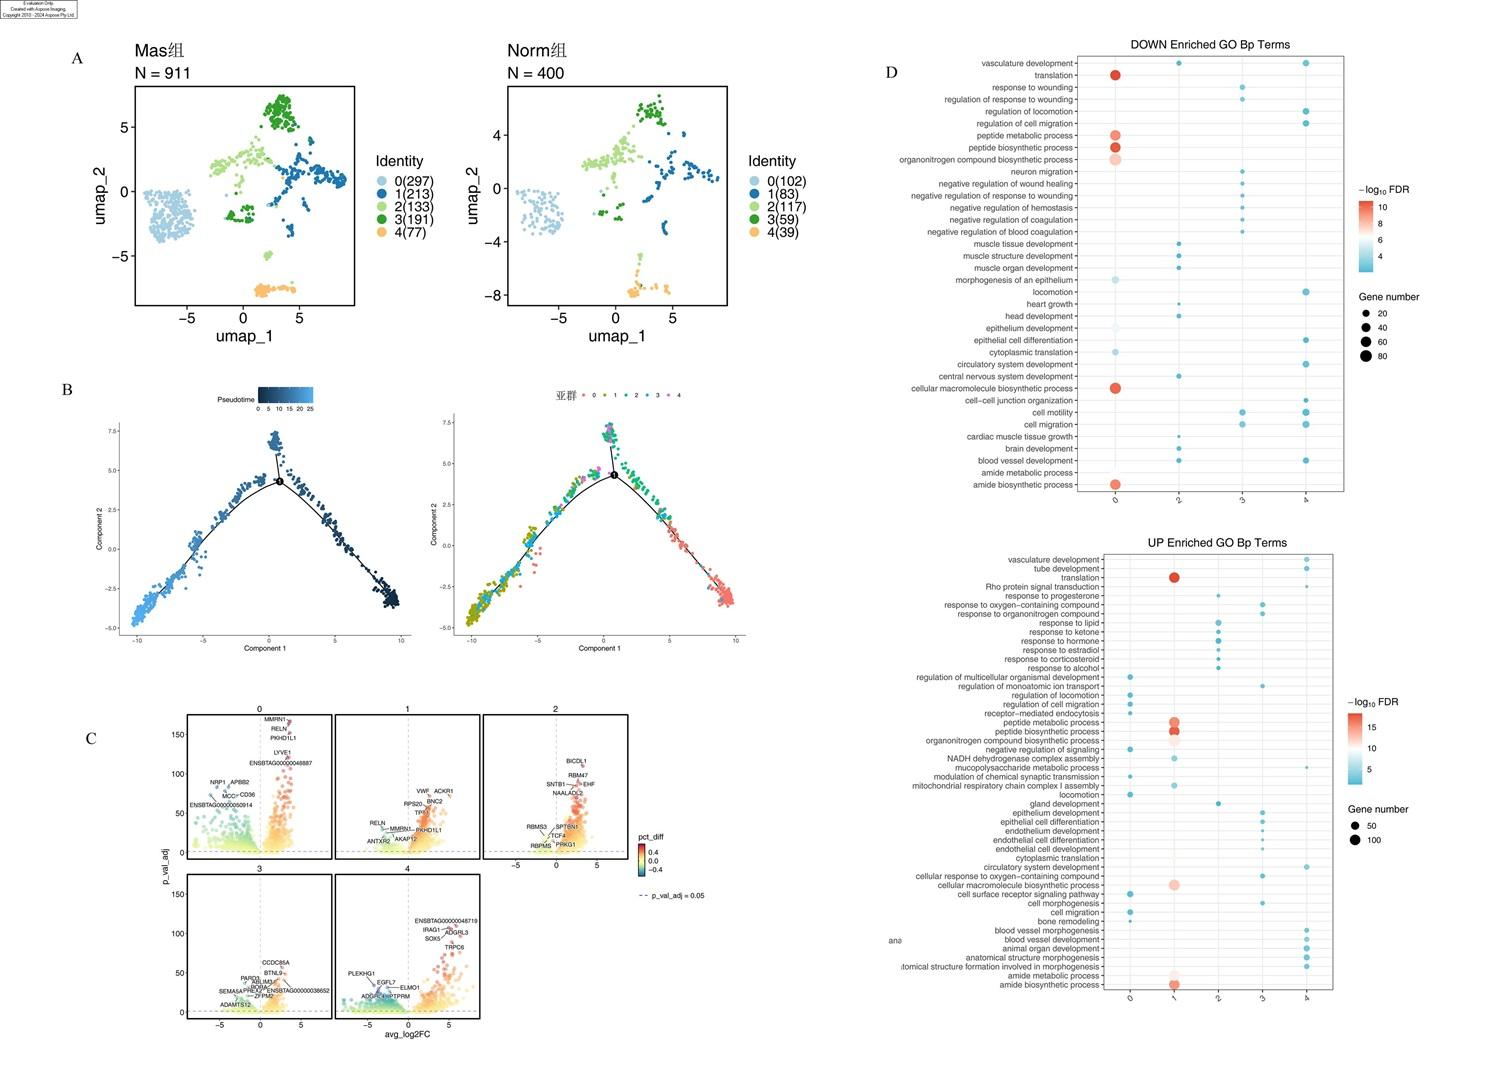
为深入解析上皮细胞的异质性,对上皮细胞群进一步降维并进行亚聚类分析,共获得6个细胞亚群(图6-A)。为明确上皮细胞亚群间的发育分化轨迹,采用Monocle2进行拟时序分析,结果显示,亚群2、亚群3和亚群4细胞处于发育起始阶段,亚群0细胞处于中间过渡阶段,而亚群1和亚群5细胞处于发育轨迹的末段(图6-B)。将患炎和健康乳腺上皮细胞DEGs进行GO富集分析,结果表明:亚群0下调DEGs主要富集在脂质应答、酮体应答和细胞对细胞外刺激应答等;亚群1上调DEGs主要富集在脂质代谢过程和脂质生物合成过程等,下调DEGs主要富集在组织发育、基于肌动蛋白丝的过程、肌动蛋白丝组织和肌动蛋白细胞骨架组织等;亚群2上调DEGs主要富集在基于肌动蛋白丝的过程和肌动蛋白细胞骨架组织等,下调DEGs主要富集在细胞内转运和细胞内蛋白转运等;亚群3下调DEGs主要富集在皮质类固醇应答、TNF超家族细胞因子产生、TNF产生和炎症反应等;亚群4上调DEGs主要富集在细胞分裂、细胞周期过程和细胞周期等,下调DEGs主要富集在孕酮应答和雌二醇应答等;亚群5上调DEGs主要富集在肽代谢过程、肽生物合成过程、酰胺代谢过程和酰胺生物合成过程等,下调DEGs主要富集在DNA模板转录调控、RNA代谢过程正调控和RNA生物合成过程正调控(图6-C图6-D)。
图6 患乳腺炎奶牛乳腺上皮细胞异质性

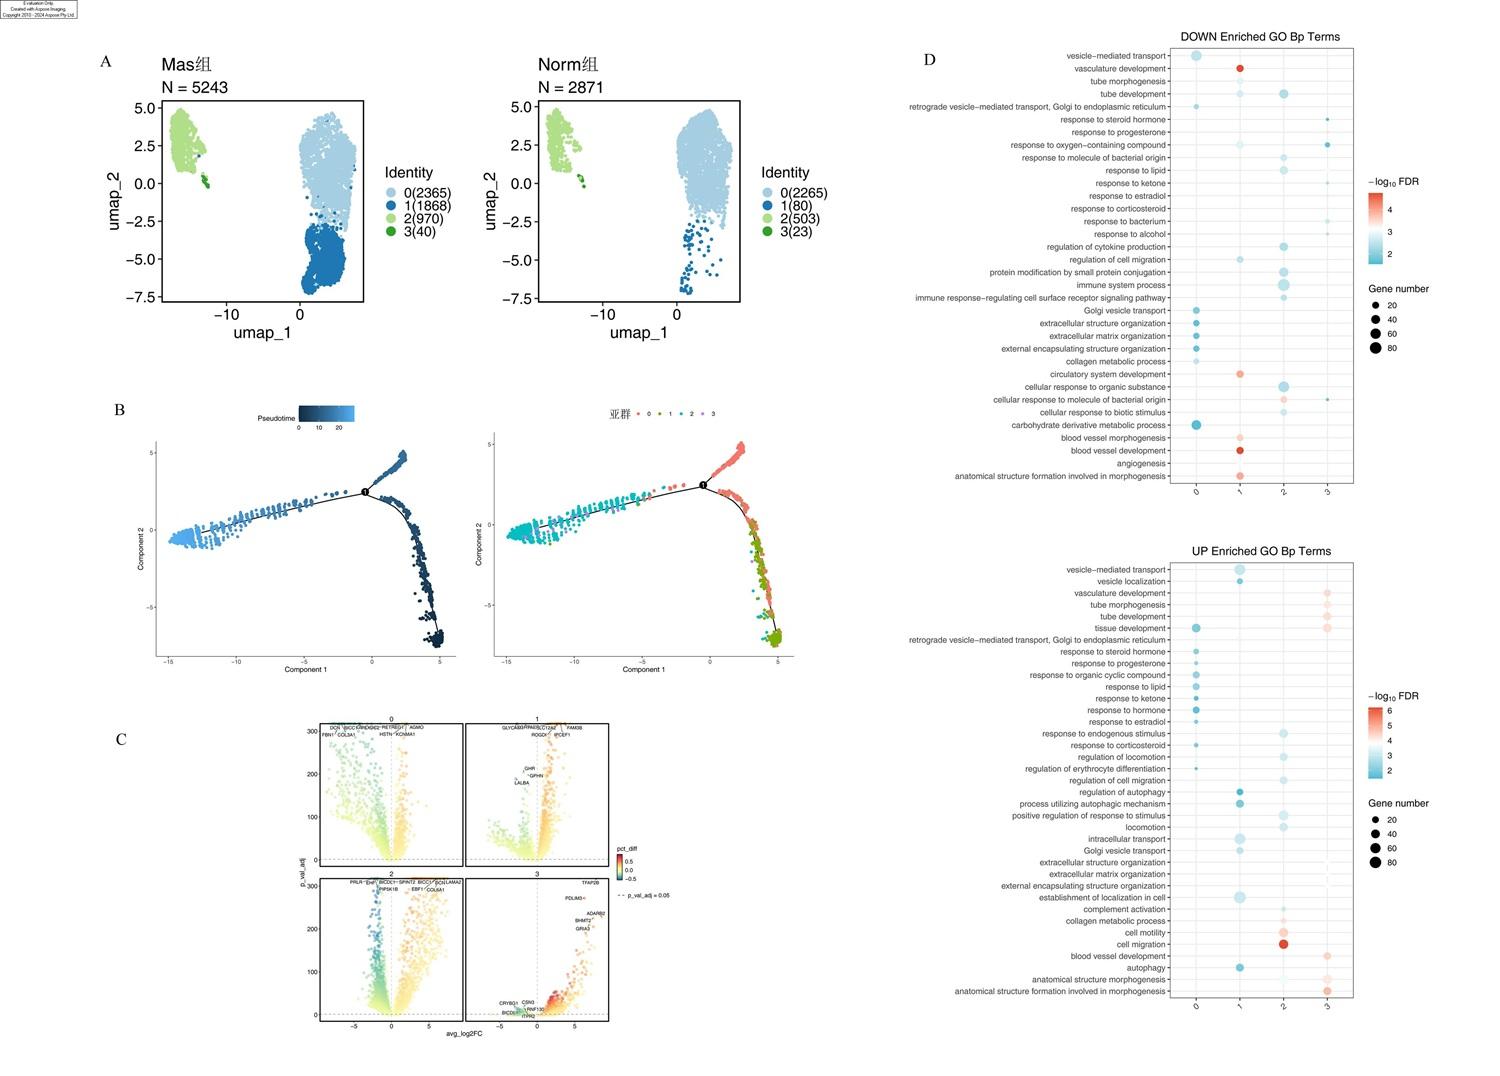
A:分辨率=0.1条件下降维聚类后的UMAP可视化图;B:亚群分化轨迹,左侧按拟时间值着色(颜色梯度表示发育进程),右侧按细胞亚群类型着色;C:不同亚群差异表达基因火山图;D:不同亚群差异表达基因GO生物过程富集结果。下图同。

Pseudotime:拟时间;Component:组分;p_val_adj:调整后P值 adjusted P-value;avg_log2FC:平均log2差异倍数;pct_diff:百分比差异 percentage difference;DOWN Enriched GO Bp Terms:下调GO生物过程富集条目;UP Enriched GO Bp Terms:上调GO生物过程富集条目。下图同 the same as below。

Fig.6 Heterogeneity of epithelial cells in mammary gland of dairy cows with mastitis

A: UMAP visualization of dimensionality reduction and clustering at resolution=0.1; B: differentiation trajectories of cell subclusters, left panel was colored by pseudotime value (color gradient indicated developmental progression), and right panel was colored by subcluster type; C: volcano plot of DEGs in different cell subclusters; D: enrichment results of biological process in GO for DEGs in different cell subclusters. The same as below.

2.6 乳腺免疫细胞亚群单细胞表征

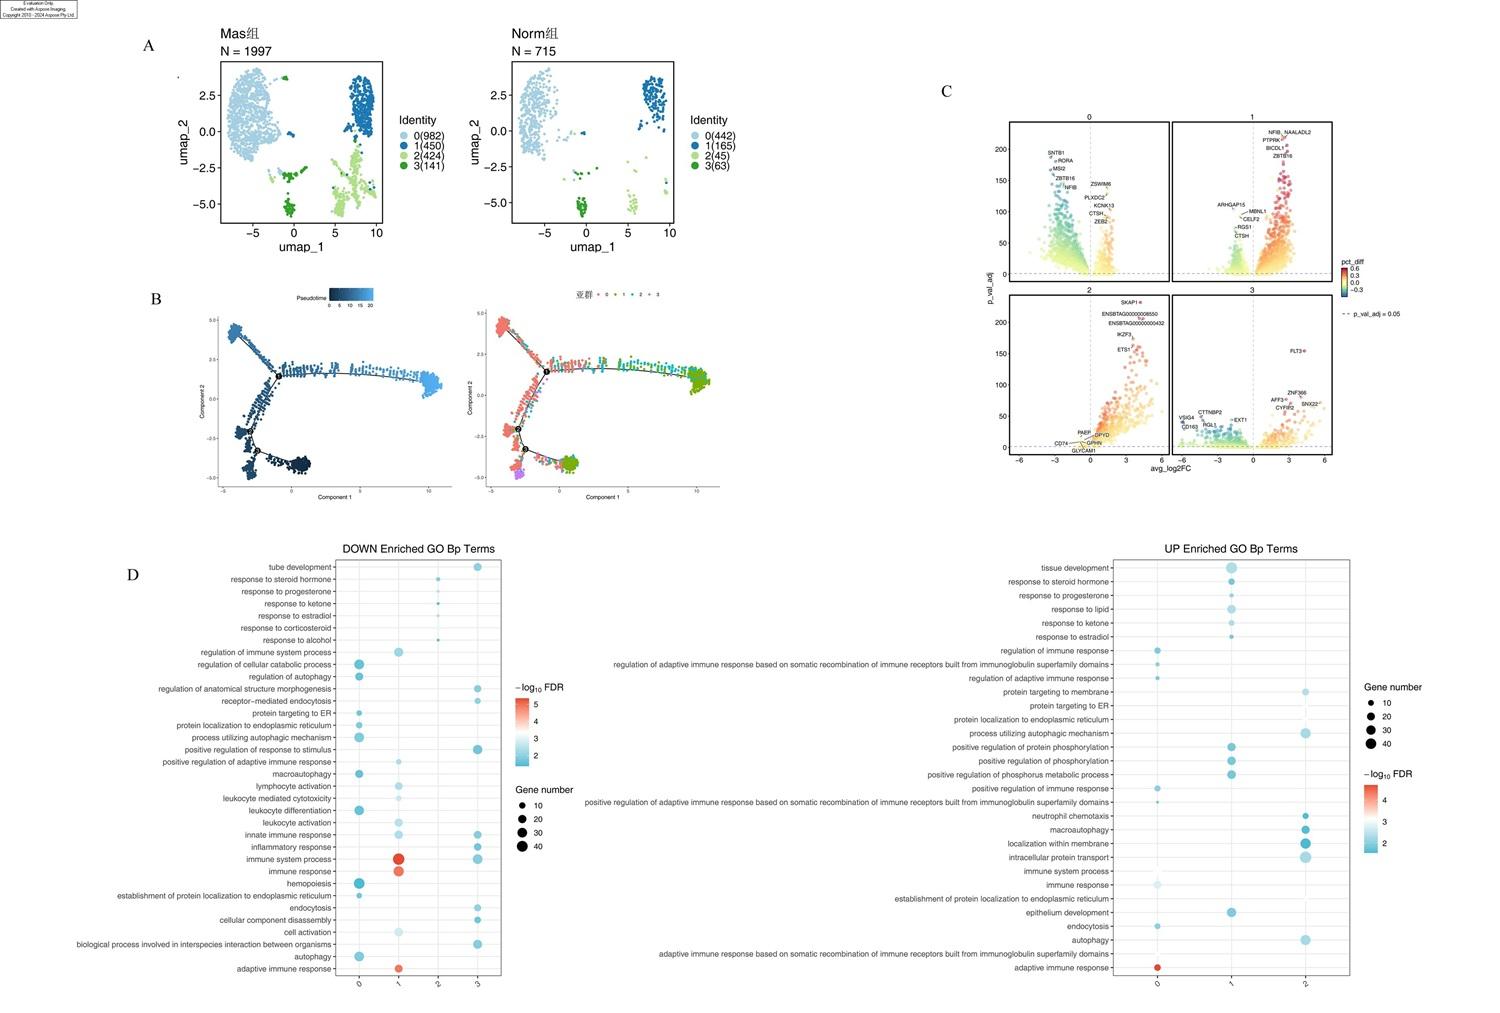
为深入解析髓系细胞的异质性,对髓系细胞群进一步降维并进行亚聚类分析,共获得4个细胞亚群(图7-A)。为明确髓系细胞亚群间的发育分化轨迹,采用Monocle2进行拟时序分析,结果显示,亚群0和亚群3细胞处于过程起始阶段,亚群2细胞处于中间过渡阶段,而亚群1细胞处于发育轨迹的末段(图7-B)。将患炎和健康乳腺髓系细胞DEGs进行GO富集分析,结果表明:亚群0上调DEGs主要富集在免疫系统过程、免疫应答和适应性免疫应答等,下调DEGs主要富集在细胞分解代谢过程调控、自噬调控、巨自噬和自噬等;亚群1上调DEGs主要富集在磷酸化正调控、磷代谢过程正调控和蛋白质磷酸化正调控等,下调DEGs主要富集在免疫系统过程、免疫应答和适应性免疫应答等;亚群2上调DEGs主要富集在蛋白靶向内质网、蛋白定位于内质网、自噬机制利用过程以及基于免疫球蛋白超家族结构域构建的免疫受体体细胞重组的适应性免疫应答正调控,下调DEGs主要富集在皮质类固醇应答等;亚群3下调DEGs主要富集在刺激应答正调控、炎症反应和内吞作用等(图7-C图7-D)。
图7 患乳腺炎奶牛乳腺髓系细胞异质性

Fig.7 Heterogeneity of myeloid cells in mammary gland of dairy cows with mastitis

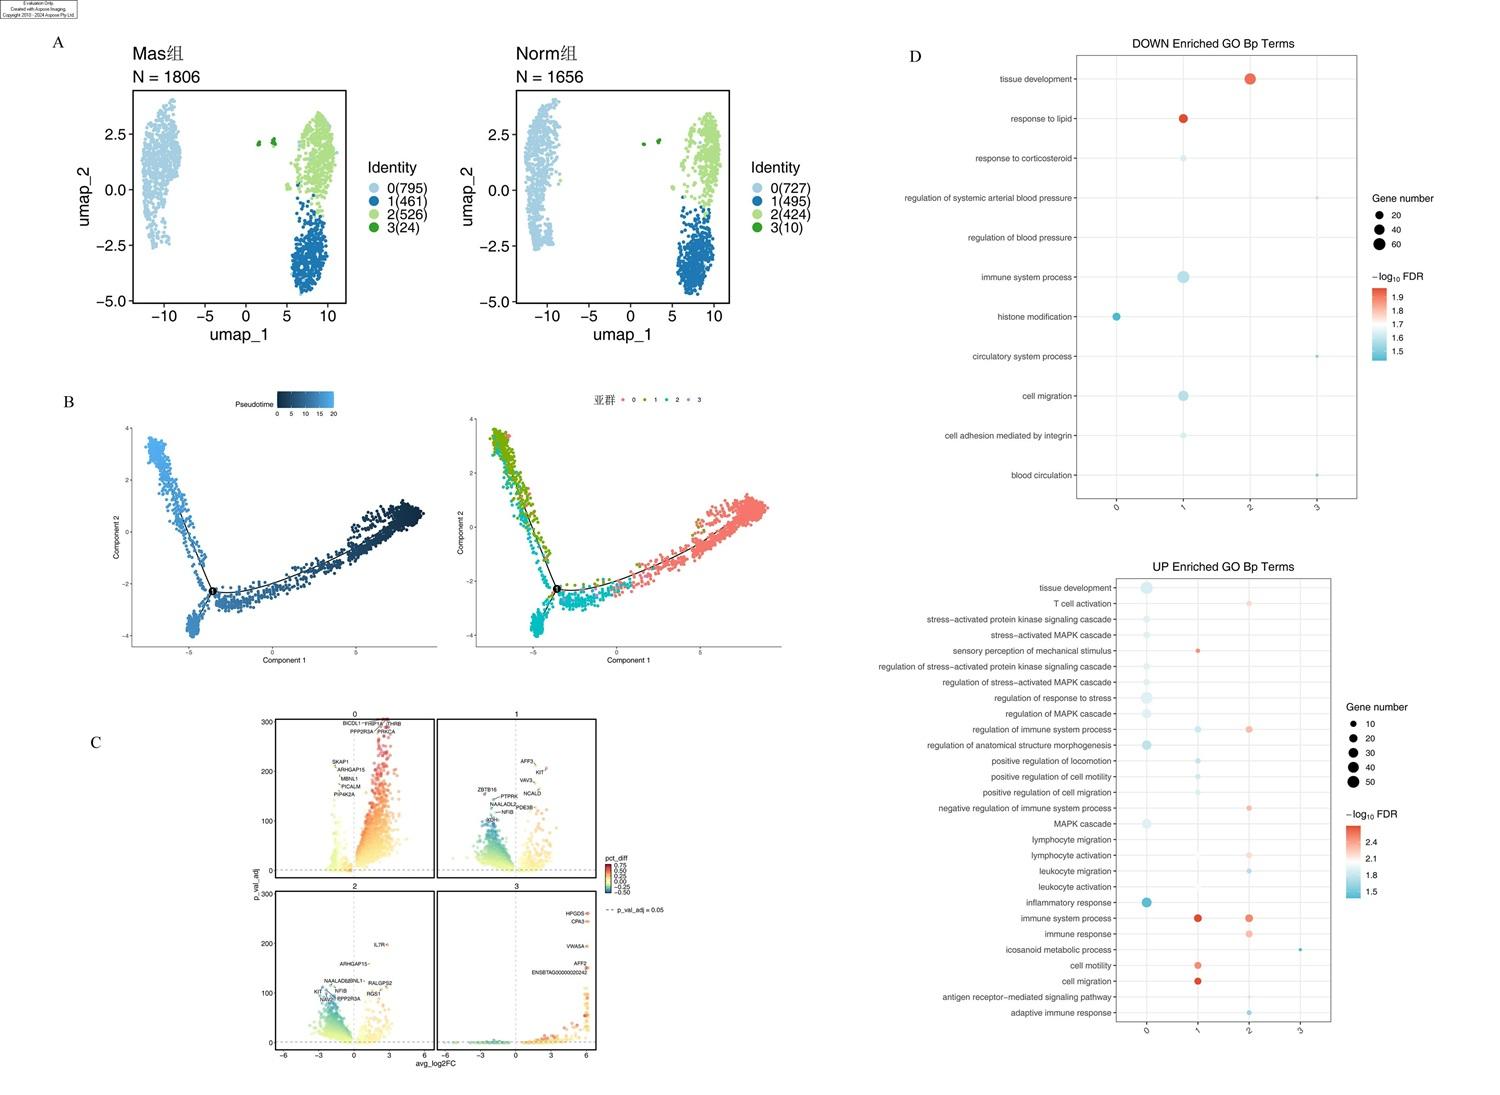
为深入解析淋巴细胞的异质性,对淋巴细胞群进一步降维并进行亚聚类分析,共获得4个细胞亚群(图8-A)。为明确淋巴细胞亚群间的发育分化轨迹,采用Monocle2进行拟时序分析,结果显示,亚群0和亚群3细胞处于发育起始阶段,亚群2细胞处于中间过渡阶段,而亚群1细胞处于发育轨迹的末段(图8-B)。将患炎和健康乳腺淋巴细胞DEGs进行GO富集分析,结果表明:亚群0上调DEGs主要富集在组织发育、应激应答调控、MAPK级联调控和炎症反应等,下调DEGs主要富集在组蛋白修饰;亚群1上调DEGs主要富集在免疫系统过程、细胞运动性和细胞迁移等,下调DEGs主要富集在脂质应答和免疫系统过程等;亚群2上调DEGs主要富集在T细胞激活、免疫系统过程负调控、免疫系统过程和免疫应答等,下调DEGs主要富集在组织发育;亚群3上调DEGs主要富集在类二十烷酸代谢过程,下调DEGs主要富集在循环系统过程和血液循环等(图8-C图8-D)。
图8 患乳腺炎奶牛乳腺淋巴细胞异质性

Fig.8 Heterogeneity of lymphocytes in mammary gland of dairy cows with mastitis

2.7 乳腺内皮细胞亚群单细胞表征

为深入解析内皮细胞的异质性,对内皮细胞群进一步降维并进行亚聚类分析,共获得5个细胞亚群(图9-A)。为明确内皮细胞亚群间的发育分化轨迹,采用Monocle2进行拟时序分析,结果显示,亚群0细胞处于发育起始阶段,亚群2和亚群4细胞处于中间过渡阶段,而亚群1和亚群3细胞处于发育轨迹的末段(图9-B)。将患炎和健康乳腺内皮细胞DEGs进行GO富集分析,结果表明:亚群0上调DEGs主要富集在运动调控、细胞迁移调控、受体介导的内吞作用和化学突触传递的调节等,下调DEGs主要富集在翻译、肽代谢过程、肽生物合成过程和细胞大分子生物合成过程等;亚群1群上调DEGs主要富集在翻译、细胞大分子生物合成过程、肽代谢过程和肽生物合成过程等;亚群2群上调DEGs主要富集在脂质应答、酮体应答、激素应答、雌二醇应答和皮质类固醇应答,下调DEGs主要富集在血管发育、肌肉组织发育、肌肉结构发育和肌肉器官发育等;亚群3群上调DEGs主要富集在内皮发育、内皮细胞分化和内皮细胞发育等,下调DEGs主要富集在创伤应答、创伤应答调控、止血负调控、凝血负调控和血液凝固负调控等;亚群4群上调DEGs主要富集在血管形态发生、血管发育、动物器官发育和解剖结构形态发生等,下调DEGs主要富集在运动调控和细胞迁移调控等(图9-C图9-D)。
图9 患乳腺炎奶牛乳腺内皮细胞异质性

Fig.9 Heterogeneity of endothelial cells in mammary gland of dairy cows with mastitis

2.8 乳腺成纤维细胞亚群单细胞表征

为深入解析成纤维细胞的异质性,对成纤维细胞群进一步降维并进行亚聚类分析,共获得4个细胞亚群(图10-A)。为明确成纤维细胞亚群间的发育分化轨迹,采用Monocle2进行拟时序分析,结果显示,亚群1细胞处于发育起始阶段,亚群0细胞处于中间过渡阶段,而亚群2和亚群3细胞处于发育轨迹的末段(图10-B)。将患炎和健康乳腺成纤维细胞DEGs进行GO富集分析,结果表明:亚群0上调DEGs主要富集在组织发育、脂质应答、酮体应答、激素应答和雌二醇应答等,下调DEGs主要富集在囊泡介导的转运和胶原代谢过程等;亚群1上调DEGs主要富集在细胞内转运、高尔基体囊泡转运和细胞内定位的建立等,下调DEGs主要富集在脉管系统发育、血管形态发生、血管发育和血管生成等;亚群2上调DEGs主要富集在胶原代谢过程、细胞运动性和细胞迁移等,下调DEGs主要富集在管状发育、细菌来源分子应答和细胞因子产生调控等;亚群3上调DEGs主要富集在脉管系统发育、管状形态发生、管状发育和组织发育等(图10-C图10-D)。
图10 患乳腺炎奶牛乳腺成纤维细胞异质性

Fig.10 Heterogeneity of fibroblasts in mammary gland of dairy cows with mastitis

2.9 乳腺细胞亚群中跨细胞类型细胞间通讯景观

为探究患乳腺炎奶牛乳腺中细胞间相互作用和关键途径,采用CellChat软件对所有细胞类型之间的配体-受体对进行全局分析。结果显示,与Norm组相比,Mas组细胞间互作数量和互作强度均提高(图11-A)。在Mas组中,NOTCH配体-受体通路在内皮细胞中富集,细胞黏附分子(CADM)等配体-受体通路在上皮细胞中富集,信号素4(SEMA4)配体-受体通路在淋巴细胞中富集,尿激酶型纤溶酶原激活物(PLAU)配体-受体通路在髓系细胞中富集,血管生成素样蛋白(ANGPTL)、成纤维细胞生长因子(FGF)和原钙黏蛋白(PCDH)配体-受体通路在成纤维细胞中富集(图11-B)。与Norm组相比,Mas组ECM相关通路如胶原蛋白(COLLAGEN)、层黏连蛋白(LAMININ),以及细胞信号分子通路如分泌型磷蛋白1(SPP1)特异性激活(图11-C)。
图11 患乳腺炎奶牛乳腺细胞间通信网络

A:细胞间互作数量和互作强度柱状图;B:不同类型细胞整体信号热图;C:差异信号通路信息流强度条形图(红色文字表示通路在Norm组中富集,蓝色文字表示通路在Mas组中富集,黑色文字表示通路富集没有偏好)。

Norm:健康组 health group;Mas:乳腺炎组 mastitis group;Number of inferred interactions:推测的互作数量;Interaction strength:互作强度;Overall signaling patterns:整体信号模式;Relative strength:相对强度;Relative information flow:相对信息流;Information flow:信息流。

Fig.11 Intercellular communication network in mammary gland of dairy cows

A: bar chart showing quantity and intensity of intercellular interactions; B: overall signal heat map of different types of cells; C: bar plot of differential signaling pathway information flow strength (pathways indicated by red text were enriched in Norm group, pathways indicated by blue text were enriched in Mas group, and black text indicated that pathway enrichment had no preference).

3 讨论

SCC是评估奶牛乳腺健康的关键指标,与乳品质量、奶牛健康及生产性能紧密相关[6]。一般而言,奶牛乳腺SCC以阴性、可疑和弱阳性为主,阳性病例少,说明多数奶牛乳腺无严重感染,仅少数有明显炎症,乳腺炎多为低至中度,此分布与饲养管理、卫生条件等因素相关,SCC检测可用于乳腺炎筛查和群体乳腺健康评估。细菌感染是乳腺炎的主因,本试验对39份乳样进行检测发现,大肠杆菌、凝固酶阴性葡萄球菌、无乳链球菌和金黄色葡萄球菌为主要致病菌,其中大肠杆菌检出率最高,金黄色葡萄球菌致病性强。现有研究多聚焦于单一致病菌(如金黄色葡萄球菌、大肠杆菌)的体外感染模型[3,5],虽能揭示特异性信号通路,但难以模拟生产中多病原体协同作用、宿主免疫微环境动态变化的复杂场景。实际生产中,奶牛乳腺炎混合感染占比高达71.79%,单一病原体感染仅占少数,这与De Vliegher等[2]报道的规模化奶牛场乳腺炎的流行特征一致。因此,本试验选择评分为3~4分的混合感染样本作为Mas组进行单细胞测序,更能反映生产实际中乳腺炎的真实发病状态。IL-6、IL-8、IL-1β和TNF-α这4种促炎性细胞因子可促进、加剧炎症反应[7-10]。本试验中,CM组炎症因子水平最高,乳腺炎最严重;SCM组次之,炎症较轻;Norm组最低,乳腺健康。炎症因子水平升高会加剧乳腺炎病理过程。乳腺组织病理特征与乳腺炎严重程度相关,Norm组正常乳腺组织功能和结构完好;SCM组乳腺有少量出血点和腺泡破坏,处于炎症早期;CM组乳腺红肿、出血点多且腺泡坍塌,炎症达中度,乳汁分泌功能受影响,且腺泡破坏与IL-6、TNF-α水平升高相关。
乳腺上皮细胞作为乳腺组织的功能核心,其功能重塑直接影响乳腺炎的发生发展[11]。本研究通过亚聚类分析识别出6个上皮细胞亚群,各亚群呈现独特的功能富集特征与发育轨迹[11]。亚群1上调基因富集于脂质代谢和生物合成过程通路,提示炎症状态下该亚群可能通过增强脂质代谢满足应激需求[12];但下调基因涉及组织发育和肌动蛋白细胞骨架重构,表明其结构维持能力受损[13]。亚群4高表达细胞周期和细胞分裂相关基因,显示出明显的增殖活性;而孕酮和雌二醇应答通路下调,暗示激素调节网络紊乱可能参与上皮细胞异常增殖过程。亚群5则在肽类代谢与合成通路中高度活跃,推测其通过增强蛋白质加工分泌参与炎症微环境构建[14]。KEGG功能富集分析显示乳腺上皮细胞上调基因主要富集于MAPK、PPAR等信号通路,与现有研究中MAPK信号通路激活促进上皮细胞促炎表型转化的结论[3]一致。不过,本研究首次在单细胞水平上揭示了不同上皮细胞亚群的通路激活差异:增殖型亚群以细胞周期通路激活为主,代谢型亚群则聚焦脂质代谢相关通路。病理意义上,上皮细胞亚群的代谢失衡(脂质代谢异常)、结构紊乱(肌动蛋白骨架重构障碍)和增殖异常共同破坏了乳腺上皮屏障完整性,促进炎症因子渗漏和致病菌侵袭,成为乳腺炎发生的始动环节。
髓系细胞和淋巴细胞作为乳腺局部免疫微环境的核心组成,其功能失衡是炎症放大的关键[15]。本研究中,髓系细胞分为4个亚群,其中亚群0上调基因在免疫应答和适应性免疫应答通路中高度富集,下调基因涉及自噬和细胞分解代谢过程调控,提示该亚群通过激活免疫应答启动炎症防御,同时抑制自噬过程避免过度细胞清除;亚群1则聚焦磷酸化调控,其下调基因与免疫系统过程抑制相关,表明该亚群可能参与免疫反应的“激活-终结”调控平衡;亚群2通过蛋白靶向内质网和自噬机制利用过程通路参与细胞稳态维持,同时调控免疫受体体细胞重组相关的适应性免疫应答,为炎症耐受和长期免疫记忆奠定基础[16];亚群3下调基因富集在刺激应答、炎症反应和内吞作用等通路,可能表明该亚群在免疫反应后期参与了细胞清除和组织修复过程。
淋巴细胞亚群分析结果显示,亚群1上调基因富集于免疫系统过程和细胞迁移通路,推测其通过迁移至炎症部位发挥局部免疫调节作用,与其他组织纤维化过程中免疫细胞的迁移模式相似;亚群2高表达T细胞激活和免疫系统抑制相关基因,提示其在炎症负调控中发挥关键作用,避免免疫反应过度激活导致的组织损伤[17]。KEGG功能富集分析显示,髓系细胞上调基因富集于吞噬体、溶酶体及FcγR介导的吞噬作用通路,淋巴细胞则聚焦Th1和Th2细胞分化以及T细胞受体信号通路,与现有研究中免疫细胞通过吞噬作用清除致病菌,通过T细胞分化调控免疫平衡的机制[15]相符。不过,本研究进一步明确了不同免疫细胞亚群的功能分工:髓系细胞亚群主导先天免疫应答和致病菌清除,淋巴细胞亚群侧重适应性免疫调控和炎症耐受,二者协同构成免疫防御网络。
内皮细胞通过调节血管通透性参与炎症启动和发展[18]。本研究中,5个内皮细胞亚群呈现差异化功能特征:亚群0上调细胞迁移和受体介导内吞通路,提示其在炎症早期通过增强迁移和物质转运参与应激反应;亚群1聚焦翻译和大分子生物合成,可能参与炎症后期的组织修复;亚群3高表达内皮分化相关基因,同时下调止血和凝血负调控通路,表明其通过调控血管发育和凝血平衡维持炎症微环境稳态。KEGG功能富集分析显示,内皮细胞上调基因富集于紧密连接、白细胞跨内皮迁移等通路,与内皮细胞通过增强血管通透性促进炎性细胞浸润的经典机制一致[19]。同时,本研究发现NOTCH通路在内皮细胞特异性富集,进一步揭示了内皮细胞在血管重塑和炎症调控中的新机制,补充了现有研究对内皮细胞信号通路调控的认知。
成纤维细胞作为组织修复的核心细胞,其异常激活是乳腺纤维化的关键[4]。本研究中,4个成纤维细胞亚群功能分化明显:亚群0上调基因在组织发育和激素应答通路中活跃,下调基因涉及囊泡转运和胶原代谢,暗示其功能紊乱可能导致组织重塑异常;亚群2上调胶原代谢和细胞迁移通路,在组织重建和伤口愈合中发挥核心作用[20];亚群3聚焦脉管系统发育和管状形态发生,提示其通过促进血管形成参与炎症修复过程[21]。KEGG功能富集分析显示,成纤维细胞上调基因富集于TNF、PI3K-Akt等炎症和凋亡相关信号通路,与Özgüden-Akkoc等[4]提出的成纤维细胞激活促进炎症反应和纤维化的结论相符。不过,本研究首次发现成纤维细胞亚群通过ANGPTL、FGF等配体-受体通路参与细胞间通讯,为理解成纤维细胞与其他细胞的协同作用提供了新视角。
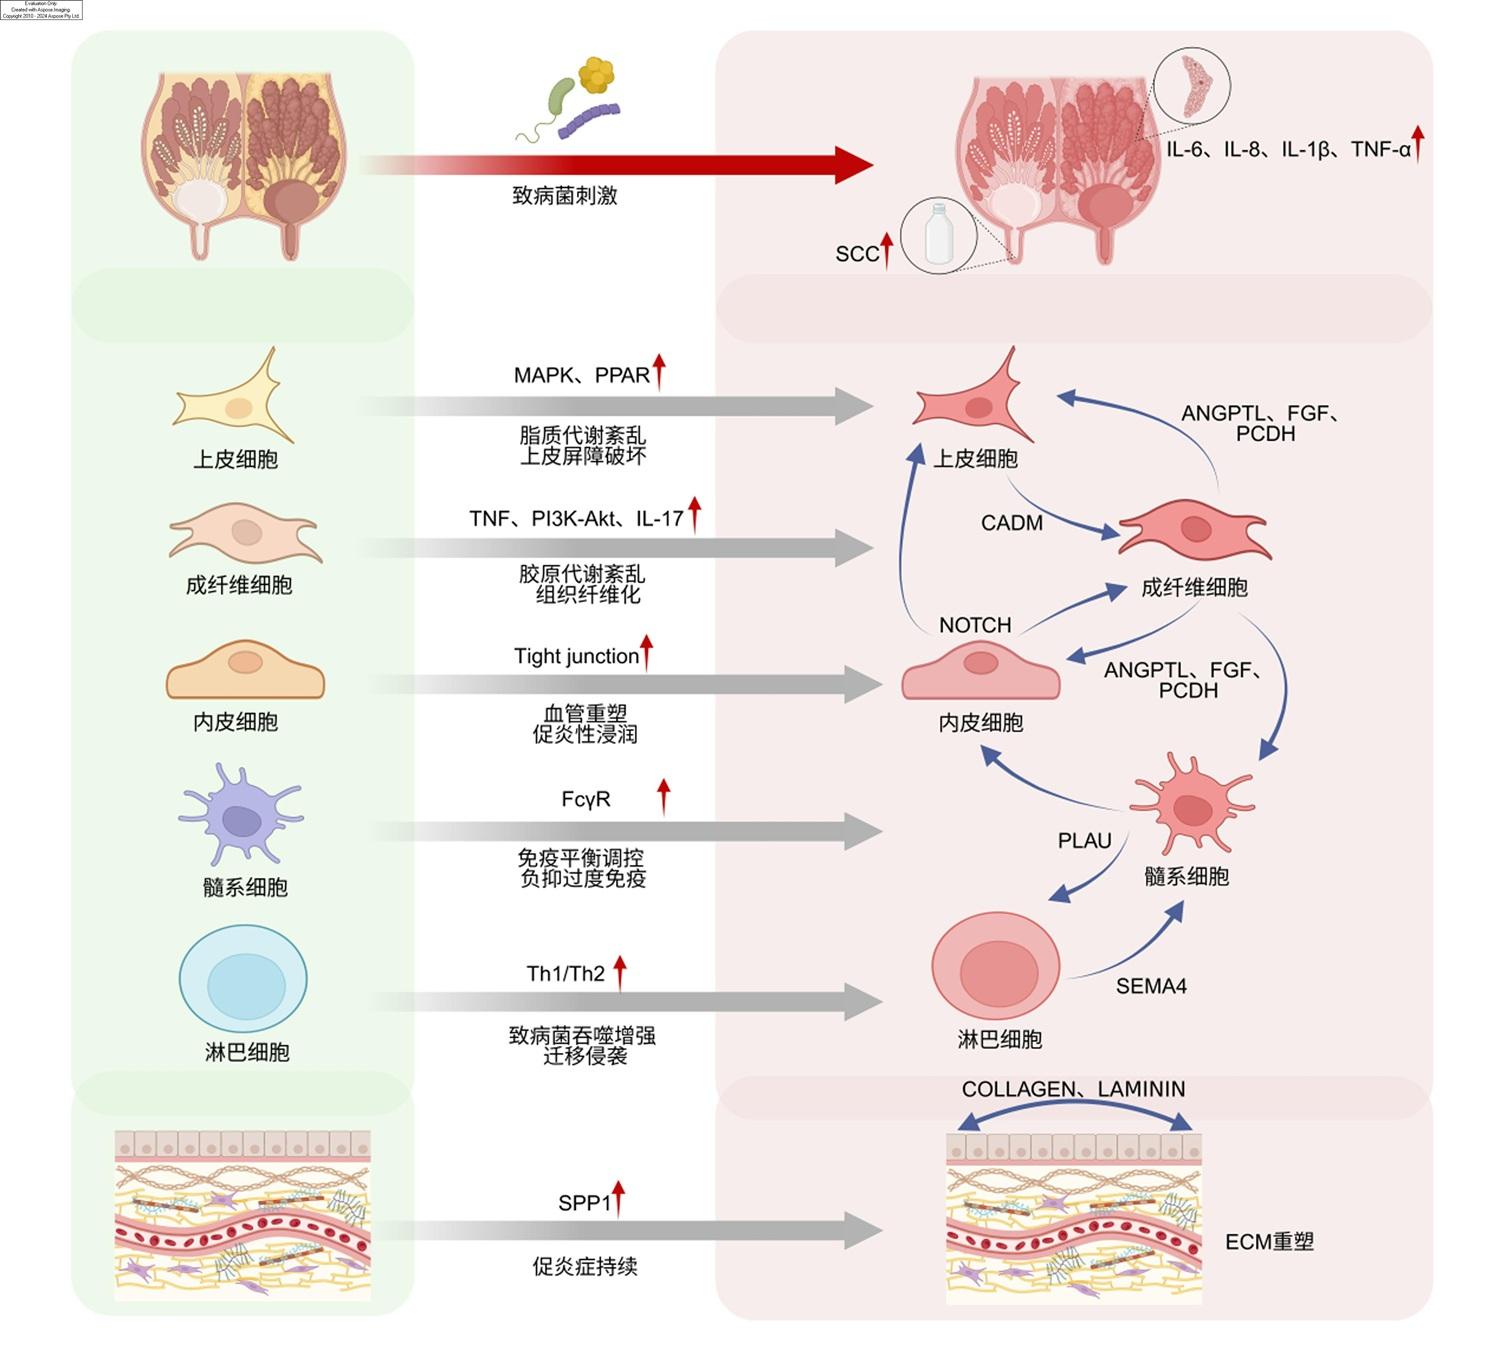
细胞间通讯分析用于揭示患乳腺炎奶牛乳腺组织中细胞间相互作用数量和信号强度的变化。与Norm组相比,Mas组细胞间在多种配体-受体通路中表现出更强的交互作用,尤其是在不同细胞类型中,这些变化表现得尤为突出。内皮细胞中NOTCH配体-受体通路富集,其在内皮细胞中核心功能是调控血管发育,包括决定内皮细胞命运、调节动脉分化和血管新生,同时还能通过与其他通路交叉作用,影响血管内皮的增殖、迁移,维持血管壁结构稳定[22]。上皮细胞中CADM配体-受体通路富集,CADM1可形成同源二聚体,与肌动蛋白结合蛋白等形成复合物,助力上皮样结构形成,维持上皮组织完整性;同时该通路还参与细胞间信号传递,调控上皮细胞的生长状态[23]。淋巴细胞中SEMA4配体-受体通路富集,该配体与周细胞表面受体丛状蛋白(plexin)B1结合,激活下游通路加剧脉络膜新生血管[24]。髓系细胞中的PLAU配体-受体通路在Mas组中表现出富集,该通路在髓系细胞中的核心功能是通过激活纤溶系统,促进ECM降解,进而增强细胞迁移和侵袭能力[25]。成纤维细胞中PCDH、FGF和ANGPTL配体-受体通路的富集,表明成纤维细胞可能通过促进细胞间的信号传导和组织重塑,参与炎症反应和修复过程[26-28]。Mas组中ECM相关通路的特异性激活,尤其是COLLAGEN和LAMININ等通路的上调,进一步凸显了ECM在炎症组织中的重要性[29]。这些变化可能与细胞间的相互作用和基质重塑密切相关,揭示了结构分子在乳腺炎症反应中的作用机制。同时,细胞信号分子如SPP1的特异性激活也指出,细胞信号传导在乳腺组织炎症中扮演着关键角色,可能参与了炎症的持续和扩展[30]。上述结果从组织、细胞及分子水平系统阐明了乳腺炎发生过程中乳腺细胞功能重塑规律和分子调控机制,可为奶牛乳腺健康调控提供理论依据(图12)。
图12 患乳腺炎奶牛乳腺组织细胞调控机制模式图

左:正常牛乳腺;右:患炎牛乳腺。红色箭头表示炎症激活、促炎信号增强,蓝色箭头表示细胞间通讯和信号传递。

SCC:体细胞数量 somatic cell count;IL:白细胞介素 interleukin;MAPK:丝裂原活化蛋白激酶 mitogen activated protein kinase;PPAR:过氧化物酶体增殖物激活受体 peroxisome proliferator-activated receptor;TNF:肿瘤坏死因子 tumor necrosis factor;PI3K:磷脂酰肌醇3-激酶 phosphatidylinositol 3-kinase;Akt:蛋白激酶B protein kinase B;Tight junction:紧密连接;FcγR:Fcγ受体 Fcγ receptor;SPP1:分泌型磷蛋白1 secretory phosphoprotein 1;CADM:细胞黏附分子 cell adhesion molecule;ANGPTL:血管生成素样蛋白 angiopoietin-like protein;FGF:成纤维细胞生长因子 fibroblast growth factor;PCDH:原钙黏蛋白 protocadherin;PLAU:尿激酶型纤溶酶原激活物 urokinase-type plasminogen activator;SEMA4:信号素4 semaphorin 4;COLLAGEN:胶原蛋白;LAMININ:层黏连蛋白 laminin。

Fig.12 Schematic diagram of cellular regulatory mechanism in mammary tissue of dairy cows with mastitis

Left: normal bovine mammary gland; right: inflamed bovine mammary gland. Red arrows indicated inflammatory activation and enhanced pro-inflammatory signaling, and blue arrows indicated cell-cell communication and signal transduction.

不过,尽管本试验绘制了患乳腺炎奶牛乳腺组织的单细胞图谱,但仍存在一些局限性。本研究使用的乳腺样本数量有限,且研究结论主要基于转录组数据分析和生物信息学预测,关键的发现亟需后续试验进行验证。

4 结论

① 本研究发现,大肠杆菌为奶牛乳腺炎优势致病菌且混合感染占比高,炎症因子水平与乳腺炎严重程度、组织病理损伤程度呈正相关。
② scRNA-seq揭示了患乳腺炎奶牛乳腺组织中5种体细胞类型的异质性特征,各细胞亚群具有独特的发育分化轨迹和功能富集模式:上皮细胞6个亚群差异化调控脂质代谢和细胞分裂,髓系细胞4个亚群和淋巴细胞4个亚群分别调控免疫应答和自噬以及细胞迁移和免疫平衡,内皮细胞5个亚群和成纤维细胞4个亚群特化于血管重塑和组织修复。
③ 本研究明确乳腺炎核心细胞学机制:上皮细胞亚群MAPK、PPAR信号通路异常激活致屏障破坏;髓系细胞亚群经FcγR、PLAU通路启动先天免疫;淋巴细胞亚群通过SEMA4通路调控免疫平衡;内皮细胞亚群激活NOTCH通路促进炎性浸润;成纤维细胞亚群经TNF、PI3K-Akt信号通路引发纤维化,通过ANGPTL/FGF/PCDH通路介导细胞间通讯。患炎乳腺组织细胞间配体-受体通路互作增强,各亚群特异性通路结合ECM及SPP1通路激活,构成炎症调控网络。
[1]
ZIGO F, VASIL’ M, ONDRAŠOVIČOVÁ S, et al. Maintaining optimal mammary gland health and prevention of mastitis[J]. Frontiers in Veterinary Science, 2021, 8:607311.

[2]
DE VLIEGHER S, FOX L K, PIEPERS S, et al. Invited review:mastitis in dairy heifers:nature of the disease,potential impact,prevention,and control[J]. Journal of Dairy Science, 2012, 95(3):1025-1040.

[3]
RAINARD P, GILBERT F B, GERMON P. Immune defenses of the mammary gland epithelium of dairy ruminants[J]. Frontiers in Immunology, 2022, 13:1031785.

[4]
ÖZGÜDEN-AKKOC C G, MUTLU A M, KESKIN A, et al. Phenotypic evaluation of mast cells in bovine mammary tissue and mastitis in the context of fibrosis[J]. The Journal of Dairy Research, 2023, 90(4):387-392.

[5]
GUO W J, FU S P, LIU J X, et al. Editorial:the mechanism of metabolic immune microenvironment,inflammation and blood milk barrier in mastitis[J]. Frontiers in Immunology, 2023, 14:1213826.

[6]
MARTIN P, BARKEMA H W, BRITO L F, et al. Symposium review:novel strategies to genetically improve mastitis resistance in dairy cattle[J]. Journal of Dairy Science, 2018, 101(3):2724-2736.

[7]
RINCON M. Interleukin-6:from an inflammatory marker to a target for inflammatory diseases[J]. Trends in Immunology, 2012, 33(11):571-577.

[8]
HAMMOND M E, LAPOINTE G R, FEUCHT P H, et al. IL-8 induces neutrophil chemotaxis predominantly via type I IL-8 receptors[J]. Journal of Immunology, 1995, 155(3):1428-1433.

[9]
LOPEZ-CASTEJON G, BROUGH D. Understanding the mechanism of IL-1β secretion[J]. Cytokine & Growth Factor Reviews, 2011, 22(4):189-195.

[10]
ZELOVÁ H, HOŠEK J. TNF-α signalling and inflammation:interactions between old acquaintances[J]. Inflammation Research, 2013, 62(7):641-651.

[11]
AKERS R M, NICKERSON S C. Mastitis and its impact on structure and function in the ruminant mammary gland[J]. Journal of Mammary Gland Biology and Neoplasia, 2011, 16(4):275-289.

[12]
SEIRINGER P, HILLIG C, SCHÄBITZ A, et al. Spatial transcriptomics reveals altered lipid metabolism and inflammation-related gene expression of sebaceous glands in psoriasis and atopic dermatitis[J]. Frontiers in Immunology, 2024, 15:1334844.

[13]
ROLFE R A, NOWLAN N C, KENNY E M, et al. Identification of mechanosensitive genes during skeletal development:alteration of genes associated with cytoskeletal rearrangement and cell signalling pathways[J]. BMC Genomics, 2014, 15(1):48.

[14]
CIAN R E, TENA-GARITAONAINDIA M, SÁNCHEZ DE MEDINA F, et al. Casein glycomacropeptide regulates gene expression in intestinal epithelial cells:effect of simulated gastrointestinal digestion and peptide microencapsulation[J]. Journal of Agricultural and Food Chemistry, 2025, 73(7):4105-4115.

[15]
EZZAT ALNAKIP M, QUINTELA-BALUJA M, BÖHME K, et al. The immunology of mammary gland of dairy ruminants between healthy and inflammatory conditions[J]. Journal of Veterinary Medicine, 2014, 2014(1):659801.

[16]
GADWALA S, GHOSH C. The role of the glucocorticoid receptor and its phosphorylation in neurological disorders[J]. International Journal of Molecular Sciences, 2025, 26(9):4213.

[17]
ANTAR S A, ASHOUR N A, MARAWAN M E, et al.Fibrosis:types, effects,markers,mechanisms for disease progression,and its relation with oxidative stress,immunity,and inflammation[J]. International Journal of Molecular Sciences, 2023, 24(4):4004.

[18]
JÓZKOWIAK M, NIEBORA J, DOMAGAŁA D, et al. New insights into endothelial cell physiology and pathophysiology[J]. Biomedicine & Pharmacotherapy, 2025, 190:118415.

[19]
FERREIRA B H, SILVA I S, MENDES A, et al. Promoting ER stress in a plasmacytoid dendritic cell line drives fibroblast activation[J]. Cell Communication and Signaling, 2025, 23(1):66.

[20]
LIU Z, BIAN X W, LUO L H, et al. Spatiotemporal single-cell roadmap of human skin wound healing[J]. Cell Stem Cell, 2025, 32(3):479-498.e8.

[21]
COOKE J P, LAI L. Role of angiogenic transdifferentiation in vascular recovery[J]. Frontiers in Cardiovascular Medicine, 2023, 10:1155835.

[22]
AKIL A, GUTIÉRREZ-GARCÍA A K, GUENTER R, et al. Notch signaling in vascular endothelial cells,angiogenesis,and tumor progression:an update and prospective[J]. Frontiers in Cell and Developmental Biology, 2021, 9:642352.

[23]
MURAKAMI Y, KASAI Y, MASUDA T, et al. Multiple functions of cell adhesion molecule 1 (CADM1) and its role in the pathogenesis of cancer and other diseases[J]. Journal of Nippon Medical School, 2025, 92(2):122-131.

[24]
HE K, DONG X, YANG T J, et al. Smoking aggravates neovascular age-related macular degeneration via Sema4D-PlexinB1 axis-mediated activation of pericytes[J]. Nature Communications, 2025, 16(1):2821.

[25]
ZHANG T, WANG B F, SU F, et al. TCF7L2 promotes anoikis resistance and metastasis of gastric cancer by transcriptionally activating PLAUR[J]. International Journal of Biological Sciences, 2022, 18(11):4560-4577.

[26]
CHEN X J, GUMBINER B M. Paraxial protocadherin mediates cell sorting and tissue morphogenesis by regulating C-cadherin adhesion activity[J]. Journal of Cell Biology, 2006, 174(2):301-313.

[27]
PRUDOVSKY I. Cellular mechanisms of FGF-stimulated tissue repair[J]. Cells, 2021, 10(7):1830.

[28]
VIZELY K, WAGNER K T, MANDLA S, et al. Angiopoietin-1 derived peptide hydrogel promotes molecular hallmarks of regeneration and wound healing in dermal fibroblasts[J]. iScience, 2023, 26(2):105984.

[29]
PFISTERER K, MILDNER M, PARSONS M. Editorial:extracellular matrix modifications in development and disease[J]. Frontiers in Cell and Developmental Biology, 2025, 13:1562296.

[30]
LIU F Z, ZHANG J F, GU X W, et al. Single-cell transcriptome sequencing reveals SPP1-CD44-mediated macrophage-tumor cell interactions drive chemoresistance in TNBC[J]. Journal of Cellular and Molecular Medicine, 2024, 28(13):e18525.

Outlines

/