RESEARCH PAPER

Sodium Butyrate Promotes Bovine Skeletal Muscle Satellite Cell Differentiation and Slow Muscle Fiber Formation via Adenosine 5'-Monophosphate-Activated Protein Kinase Signaling Pathway

  • SONG Xuelin ,
  • ZENG Ling ,
  • ZHOU Xiaonan ,
  • LI Chenglong ,
  • LIANG Jiahao ,
  • KANG Xiaolong , **
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
**professor, E-mail:

*Contributed equally

Received date: 2026-01-09

  Online published: 2026-08-13

Abstract

This experiment was conducted to investigate the effects of sodium butyrate treatment on the differentiation and myofiber type transformation of bovine skeletal muscle satellite cells (SMSCs), and to clarify the regulatory role of the adenosine 5'-monophosphate-activated protein kinase (AMPK) signaling pathway in the process of sodium butyrate treatment bovine SMSCs. The optimal sodium butyrate treatment concentration (1.0 mmol/L) was determined using the CCK-8 assay, the real-time quantitative PCR and Western blotting techniques were employed to systematically examine the mRNA and protein expression of myogenic differentiation marker genes [myogenic (MYOG) and myogenic factor 6 (MYF6)] and muscle fiber type transformation marker genes [four myosin heavy chain (MyHC) isoforms (MyHCⅠ, MyHCa, MyHCb and MyHCx)] after sodium butyrate treatment, and an AMPK signaling pathway inhibitor (5 μmol/L) was used to explore the effects of sodium butyrate on bovine SMSCs differentiation and myofiber type transformation through the AMPK pathway. The results showed as follows: 1) compared with 0 d, the sodium butyrate treatment for 2 and 4 d significantly or extremely significantly up-regulated the mRNA and protein relative expression levels of MYOG and MYF6 (P<0.05 or P<0.01), extremely significantly up-regulated the mRNA expression levels of MyHCⅠ and MyHCa and protein relative expression level of slow MyHC (P<0.01), extremely significantly down-regulated the mRNA expression level of MyHCb and protein relative expression level of fast MyHC (P<0.01), indicating that sodium butyrate treatment could effectively drive the differentiation process of bovine SMSCs, and specifically induce the slow myofiber formation. 2) Compared with 0 d, the sodium butyrate treatment 2 and 4 d extremely significantly up-regulated the mRNA expression levels of AMPK signaling pathway marker genes [AMPKα1, AMPKα2, silent information regulator 1 (SIRT1) and peroxisome proliferator activated receptor-γ coactivator-1α (PGC-1α)] (P<0.01), indicating that sodium butyrate treatment could activate the AMPK signaling pathway. 3) The addition of AMPK signaling pathway inhibitor extremely significantly inhibited the mRNA expression levels of AMPKα1, SIRT1, AMPKα2, MYOG, MYF6, MyHCⅠ and MyHCa (P<0.01); the co-treatment of sodium butyrate and AMPK signaling pathway inhibitor extremely significantly alleviated the promoting effects of sodium butyrate on the mRNA expression of MYF6, MYOG, MyHCⅠ and MyHCa (P<0.01), and extremely significantly alleviated the inhibitory effects of sodium butyrate on the mRNA expression of MyHCb and protein expression of fast MyHC (P<0.01), indicating that the AMPK signaling pathway played a non-negligible regulatory role in sodium butyrate induced differentiation and myofiber formation in bovine SMSCs. In conclusion, sodium butyrate promotes the differentiation of bovine SMSCs and the formation of slow myofibers, and this regulation may be mediated through the AMPK signaling pathway.

Cite this article

SONG Xuelin , ZENG Ling , ZHOU Xiaonan , LI Chenglong , LIANG Jiahao , KANG Xiaolong . Sodium Butyrate Promotes Bovine Skeletal Muscle Satellite Cell Differentiation and Slow Muscle Fiber Formation via Adenosine 5'-Monophosphate-Activated Protein Kinase Signaling Pathway[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 6150 -6164 . DOI: 10.12418/CJAN2026.492

骨骼肌作为机体最大的代谢器官,在全身能量代谢中起着关键作用,骨骼肌起源于脊椎动物的胚胎前体细胞群,约占畜禽体重的40%[1-2]。已有研究发现,骨骼肌的生长发育与畜禽产肉量、肉品质等多种经济性状存在密切的联系[3]。骨骼肌的生长和再生过程,很大程度上依赖于骨骼肌卫星细胞(skeletal muscle satellite cells,SMSCs)与其所处微环境之间的相互作用,SMSCs本身是具有增殖分化能力的干细胞,在骨骼肌的发育、修复和再生中发挥着核心作用[4-5]。骨骼肌生成的关键诱导物——肌源性调节因子(myogenic regulatory factors,MRFs),包括成肌分化抗原(myogenic differentiation antigen,MYOD)、肌细胞生成素(myogenic,MYOG)、肌源性因子5(myogenic factor 5,MYF5)和肌源性因子6(myogenic factor 6,MYF6),这些因子在骨骼肌定型和肌细胞分化进程中发挥着核心调控作用[6]。在骨骼肌发育过程中,MRFs通过激活其自身转录实现自我调控,广泛参与其他骨骼肌生成相关基因的转录过程,并在多个层面协同影响骨骼肌的发育[7-8]。Yamamoto等[9]研究表明,在骨骼肌再生和分化过程中,MRFs发挥着阶段特异性的核心作用,MYODMYF5主要在损伤后被迅速诱导表达,是激活SMSCs并赋予其分化能力所不可或缺的起始因子,MYOGMYF6则在后续阶段高度表达,通过促进肌细胞的分化和融合,成为驱动肌管生成过程中的关键执行因子[10]
畜禽肉质的形成受到骨骼肌内在特性的影响,而这一特性本质上源于不同肌纤维类型的特定组合[11-12]。作为肌纤维类型的常用标记分子,肌球蛋白重链(myosin heavy chain,MyHC)包含4种主要亚型:MyHCⅠ、MyHCⅡa、MyHCⅡb和MyHCⅡx,根据主要表达的MyHC亚型,哺乳动物肌纤维类型可划分为慢速MyHC和快速MyHC,其中后者可进一步细分为Ⅱa、Ⅱb和Ⅱx型。Ⅰ型和Ⅱa型肌纤维因富含细胞色素和肌红蛋白,通常表现出较强的氧化代谢能力及相对较小的纤维直径[13-14],对家畜的肉品质起着正向调节作用。已有研究表明,畜禽肉品质的多种关键特性——颜色、持水性、嫩度及风味等指标,均与肌纤维的组成密切相关[15]。目前,通过外源添加小分子物质调控肌纤维类型进而改善肉品质,已成为广泛关注的研究方向之一,相关报道也日益增多。如在羔羊饲粮中补充益生菌,可优化肌纤维的组织特性,促进肌内脂肪的沉积,有效改善羔羊肉品质[16]
在骨骼肌的生长发育过程中,众多基因和相关信号通路参与其复杂的调控过程,其中,单磷酸腺苷活化蛋白激酶(AMP-activated protein kinase,AMPK)作为关键的细胞能量传感器之一,主要通过激活分解代谢途径促进ATP生成、抑制生物合成途径减少能量消耗等方式,发挥维持能量稳态的核心作用[17],AMPK信号通路[AMPK/沉默信息调节因子1(silent information regulator 1,SIRT1)SIRT1/过氧化物酶体增殖物激活受体-γ共激活因子-1α(peroxisome proliferator activated receptor-γ coactivator-1α,PGC-1α)]已被报道参与调控骨骼肌细胞分化[18]、骨骼肌线粒体功能[19]、肌纤维类型的变化[20]等生物学过程。研究表明,在C2C12小鼠肌管模型中,添加番茄红素通过激活AMPK信号通路促使肌纤维特性由快速肌纤维向慢速肌纤维转化,从而显著提高了慢速肌纤维的相对比例[21],添加不饱和脂肪酸可以通过激活AMPK信号通路促进肌纤维的发育形成及肉品质的提高[22]。上述研究均表明,AMPK信号通路对骨骼肌的发育具有核心调控作用,在骨骼肌细胞分化进程及调节肌纤维形成中发挥着不可或缺的关键作用。
丁酸作为一种短链脂肪酸,主要由结肠或瘤胃中的微生物发酵碳水化合物所产生,在维持与改善胃肠道组织形态、调节肠道菌群组成等方面发挥着重要的作用,丁酸经肠腔吸收进入机体后广泛参与宿主的代谢调控[23]。已有研究表明,丁酸(或其钠盐、丁酸钠等)具有减轻肌肉萎缩[24]、增加动物免疫功能[25]、保护瘤胃上皮[26]、缓和氧化应激[27]等功能。在改善肉品质方面,有研究表明,饲粮中添加丁酸钠可增加鸡肉中水分含量,降低滴水损失和肉色亮度值[28],从而有效提升鸡肉品质;在饲喂高脂肪饮食的啮齿类动物中,补充丁酸盐可促进小鼠Ⅰ型肌纤维的比例升高[29],进而实现对肌纤维类型的调控作用;在育肥猪饲粮中添加丁酸钠可促进肌内脂肪沉积,降低背最长肌的剪切力,促进慢速肌纤维的形成[30]。鉴于上述背景,本研究以牛骨骼肌细胞为研究对象,探究外源添加丁酸钠对牛SMSCs分化和肌纤维类型转化的影响,为外源添加小分子物质改善家畜肉品质及人工调控家畜肌纤维形成提供理论支撑。

1 材料与方法

1.1 试验材料

本动物试验获得宁夏大学科学技术伦理委员会批准(审批编号:24-F-062)。自宁夏回族自治区银川市某养殖场选购1周龄左右的秦川牛,采集背最长肌,通过消化法分离出原代牛SMSCs进行冻存,所有采样工具均经过高压灭菌处理。丁酸钠购自美国Merck & Co., Inc.公司,AMPK信号通路抑制剂Compound C购自美国APExBIO Technology公司。

1.2 试验方法

1.2.1 牛SMSCs分离培养

牛SMSCs依据Ding等[31]的方法进行分离培养:采集1周龄左右的秦川牛背最长肌,酒精浸泡5 min,使用肌肉组织冲洗液(95 mL磷酸盐缓冲液,加入5 mL 2%青链霉素,经0.22 μm滤膜过滤)多次冲洗肌肉组织去除残留酒精,剔除肌肉中的结缔组织后,将其剪成1 mm3左右的肌肉组织碎块;取适量肌肉组织碎块转移至50 mL离心管中,37 ℃条件下依次用2%胶原酶Ⅰ消化1 h、胰蛋白酶消化30 min;加入3 mL完全培养基终止消化;将肌肉组织悬浮液进行过滤,800×g离心5 min,将沉淀物转移至培养瓶内,加入4 mL完全培养基,放至培养箱中培养。

1.2.2 细胞纯化

使用差速贴壁法纯化细胞:将分离出的原代细胞,加入1 mL胰蛋白酶消化2~3 min,取悬浮细胞转移至新的培养瓶继续培养,弃去贴壁细胞;2 d后更换培养液并观察细胞生长情况。

1.2.3 蛋白提取及免疫印迹

细胞总蛋白提取:使用胰酶消化法收集细胞,转移至离心管中,132×g离心5 min,去除上清保留沉淀;再加入2 mL冷磷酸盐缓冲液,800×g离心5 min,清洗2次。加入200 μL细胞蛋白提取液(1 mL冷裂解缓冲液加入10 μL磷酸酶抑制剂、1 μL蛋白酶抑制剂和10 μL 100 mmol/L苯甲磺酰氟);置于4 ℃摇床(北京六一生物科技有限公司)上,剧烈振荡30 s,放置冰上4 min,重复5次;低温高速冷冻离心机(德国Eppendorf AG公司)4 ℃、13 400×g离心5 min,取上清为细胞总蛋白提取物,使用BCA法测定总蛋白浓度。
蛋白免疫印迹:将蛋白样品加入蛋白上样缓冲液(5×SDS-PAGE),100 ℃煮沸6 min使蛋白变性,之后进行凝胶电泳,电泳结束后,将目的蛋白凝胶块置于转膜缓冲液中(100 mL 10×Tris/Glycine Buffer转膜液加入200 mL甲醇和700 mL蒸馏水)平衡后进行转膜;将转膜后的聚偏二氟乙烯(PVDF)膜浸泡在3%牛血清白蛋白(BSA)(10 mL 1×TBST加入300 mg BSA)封闭液中,室温下振荡封闭1 h;加入一抗,4 ℃冰箱中孵育12~16 h;孵育结束后,用1×TBST(100 mL 10×TBST加入900 mL蒸馏水)洗膜4次,每次10 min;加入二抗,室温摇床孵育1 h,用1×TBST进行洗膜3次,每次10 min;避光条件下,用化学发光液显色,利用Quantity One 4.6.2分析条带灰度值。

1.2.4 细胞CCK-8检验

将牛SMSCs接种于96孔细胞培养板中,稳定贴壁后用丁酸钠终浓度为0、0.5、1.0、1.5、2.0 mmol/L的完全培养基分别处理48 h,每组6次重复。丁酸钠处理后,避光条件下加入CCK-8试剂(10 μL),室温孵育2 h,用酶标仪(Perkin Elmer Envision,英国)测量450 nm处的吸光度值。

1.2.5 细胞总RNA提取及实时荧光定量PCR(quantitative real-time PCR,RT-qPCR)

细胞总RNA提取:按照TRIzol® Reagent(Thermo Fisher Scientific,美国)说明书提取细胞总RNA,用反转录试剂盒(上海碧云天生物技术有限公司)将总RNA反转录为cDNA。
RT-qPCR:根据NCBI中收录的牛源AMPKα1、AMPKα2、SIRT1、PGC-1αMYOGMYF6、MyHCⅠ、MyHCaMyHCbMyHCx、甘油醛-3-磷酸脱氢酶(GAPDH)基因的编码序列区,使用Primer 5.0软件进行引物设计,引物序列由上海生工进行合成(表1)。根据实时荧光定量试剂盒(Biomarker 2X SYBR green fast qPCR mix)对目的基因进行定量,反应条件为:95 ℃预变性3 min;95 ℃变性5 s,60 ℃退火30 s,72 ℃延伸45 s(共40个循环);终延伸72 ℃,5 min。以GAPDH作为内参基因,目的基因的mRNA相对表达量用2-△△Ct法计算。
表1 细胞分化、肌纤维类型及AMPK信号通路相关基因引物序列

Table 1 Primer sequences of genes involved in cell differentiation, muscle fiber types and AMPK signaling pathway

基因
Genes
登录号
Accession
number
引物序列
Primer sequences (5'—3')
产物长度
Product
length/bp
单磷酸腺苷活化蛋白激酶α1
AMPKα1
NM_001109802 F:GCAACGAGCCCACCAGAT
R:TTCCTCCGAACACGCAAA
284
单磷酸腺苷活化蛋白激酶α2
AMPKα2
NM_001205605 F:TCTGCCGTGGATTACTGT
R:AGCCTGCCTGAGATGACT
194
沉默信息调节因子1
SIRT1
NM_001192980 F:TATTTATGCTCGCCTTGC
R:CTGCTCCAGTGTATCTATGTTC
223
过氧化物酶体增殖物激活受体-γ共激活因子-1α
PGC-1α
NM_177945 F:AAGCCAACCAAGATAACC
R:CTTCCTTTCCTCGTGTCC
209
肌细胞生成素
MYOG
NM_001111325 F:GGCGTGTAAGGTGTGTAAG
R:CTTCTTGAGTCTGCGCTTCT
85
肌源性因子6
MYF6
NM_181811 F:CCCCTTCAGCTACAGACCC
R:CCTCCTTCCTTGGCAGTTAT
126
肌球蛋白重链Ⅰ
MyHC
NM_174727 F:TCCCTGATCCACTACGC
R:TGCCTTTGCCCTTCTC
178
肌球蛋白重链Ⅱa
MyHCa
NM_001166227 F:TGGAGCGGATGAAGAAGAACA
R:GCTTCTGCTCACTCTCTACCTCTC
159
肌球蛋白重链Ⅱb
MyHCb
XM_002695806 F:AGTGCTATCCCAGAGGGTCAGT
R:AGCTTTTCATCTCGCATCTCCT
161
肌球蛋白重链Ⅱx
MyHCx
NM_174117 F:AGAAGCTGTGAACGCCAAAT
R:TGTGCTAAGGGAGCGAGACT
226
甘油醛-3-磷酸脱氢酶
GAPDH
NM_001034034 F:TCGGAGTGAACGGATTCGGC
R:ATGGCGACGATGTCCACTTT
82

1.2.6 AMPK信号通路验证试验

试验共分为4个组:对照组、抑制剂组(添加5.0 μmol/L Compound C)、丁酸钠组(添加1.0 mmol/L丁酸钠)、丁酸钠和抑制剂共处理组(先添加5.0 μmol/L Compound C预孵育60 min后,再添加1.0 mmol/L丁酸钠处理48 h),分别检测各组牛SMSCs细胞分化指标(MYF6、MYOG的mRNA和蛋白相对表达量)、肌纤维类型指标(MyHCⅠ、MyHCaMyHCxMyHCb的mRNA相对表达量及快速MyHC、慢速MyHC蛋白相对表达量)。

1.3 数据统计与分析

所有数据均使用SPSS 25.0软件进行单因素方差分析,结果以“平均值±标准误”的形式呈现,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 适宜丁酸钠处理浓度

为了明确牛SMSCs的适宜丁酸钠处理浓度,本试验采用0、0.5、1.0、1.5、2.0 mmol/L的丁酸钠分别处理牛SMSCs,通过CCK-8法筛选出适宜丁酸钠处理浓度。如图1所示,与0 mmol/L的丁酸钠相比,1.0 mmol/L的丁酸钠处理后细胞相对活力显著降低(P<0.05),1.5、2.0 mmol/L的丁酸钠处理后细胞相对活力极显著降低(P<0.01)。1.0 mmol/L的丁酸钠处理后,牛SMSCs生长态势良好,形态均一规则,细胞相对活力较优,表明1.0 mmol/L的丁酸钠处理效果较好,可作为后续试验的适宜丁酸钠处理浓度。
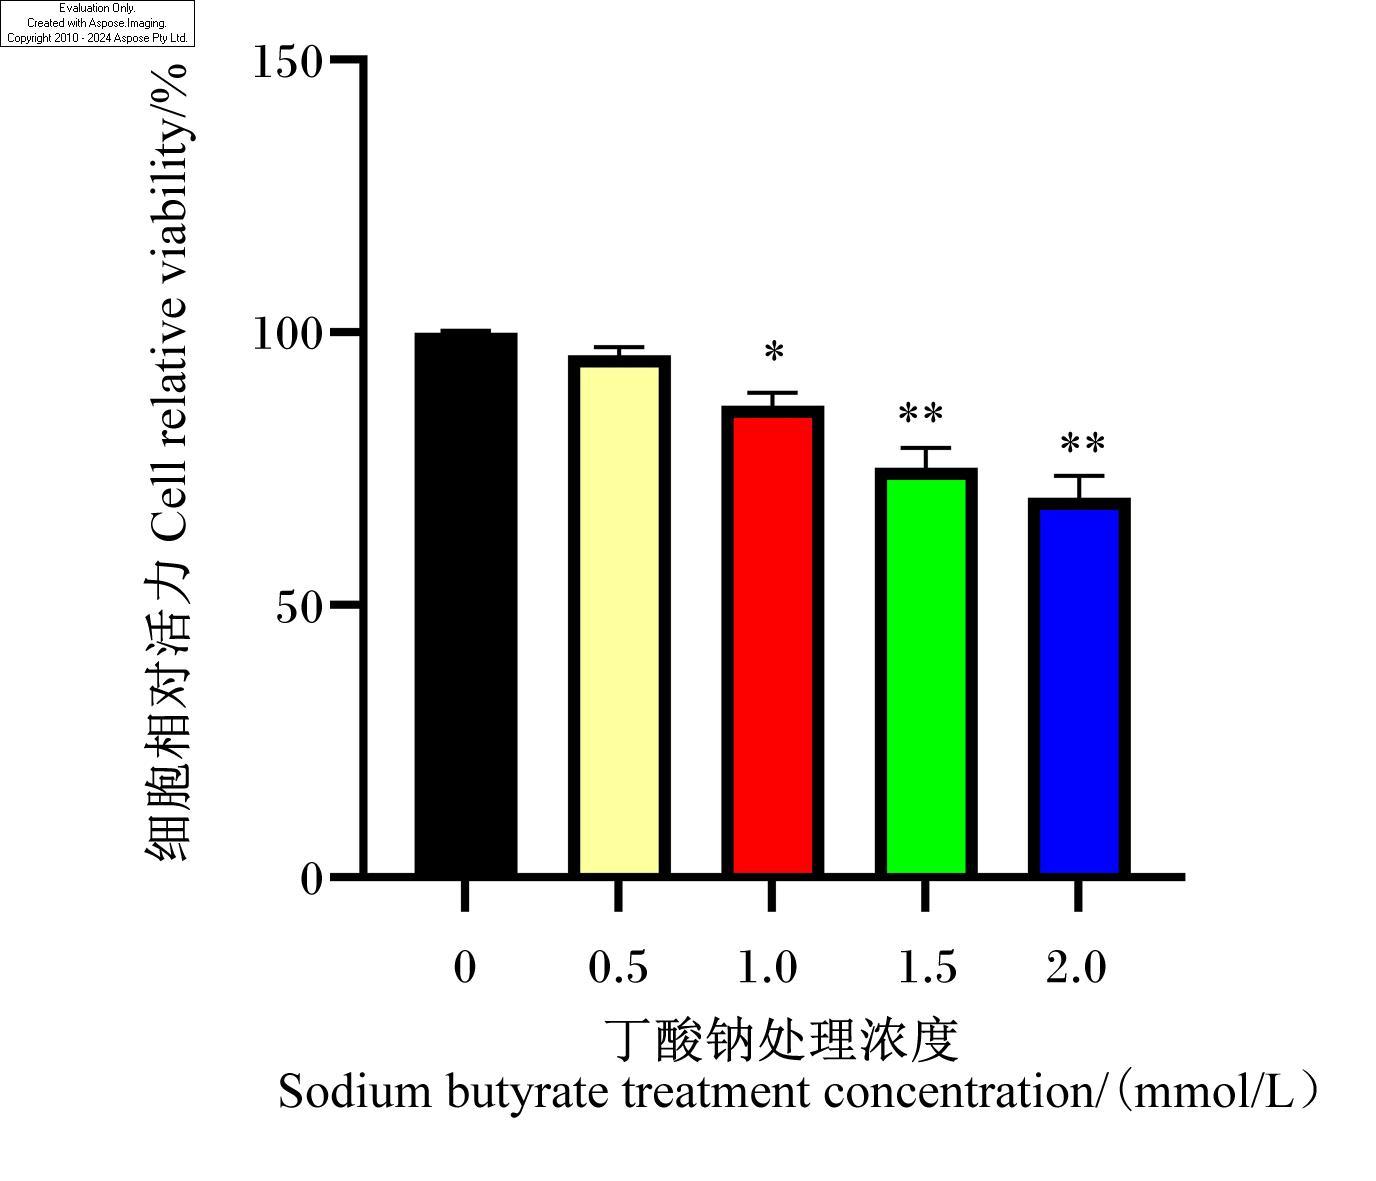
图1 CCK-8法检测细胞相对活力

*:差异显著(P<0.05);**:差异极显著(P<0.01)。下图同。

Fig.1 Cell relative viability detected by CCK-8 assay

*: significant difference (P<0.05); **: extremely significant difference (P<0.01). The same as below.

2.2 丁酸钠处理对牛SMSCs分化的影响

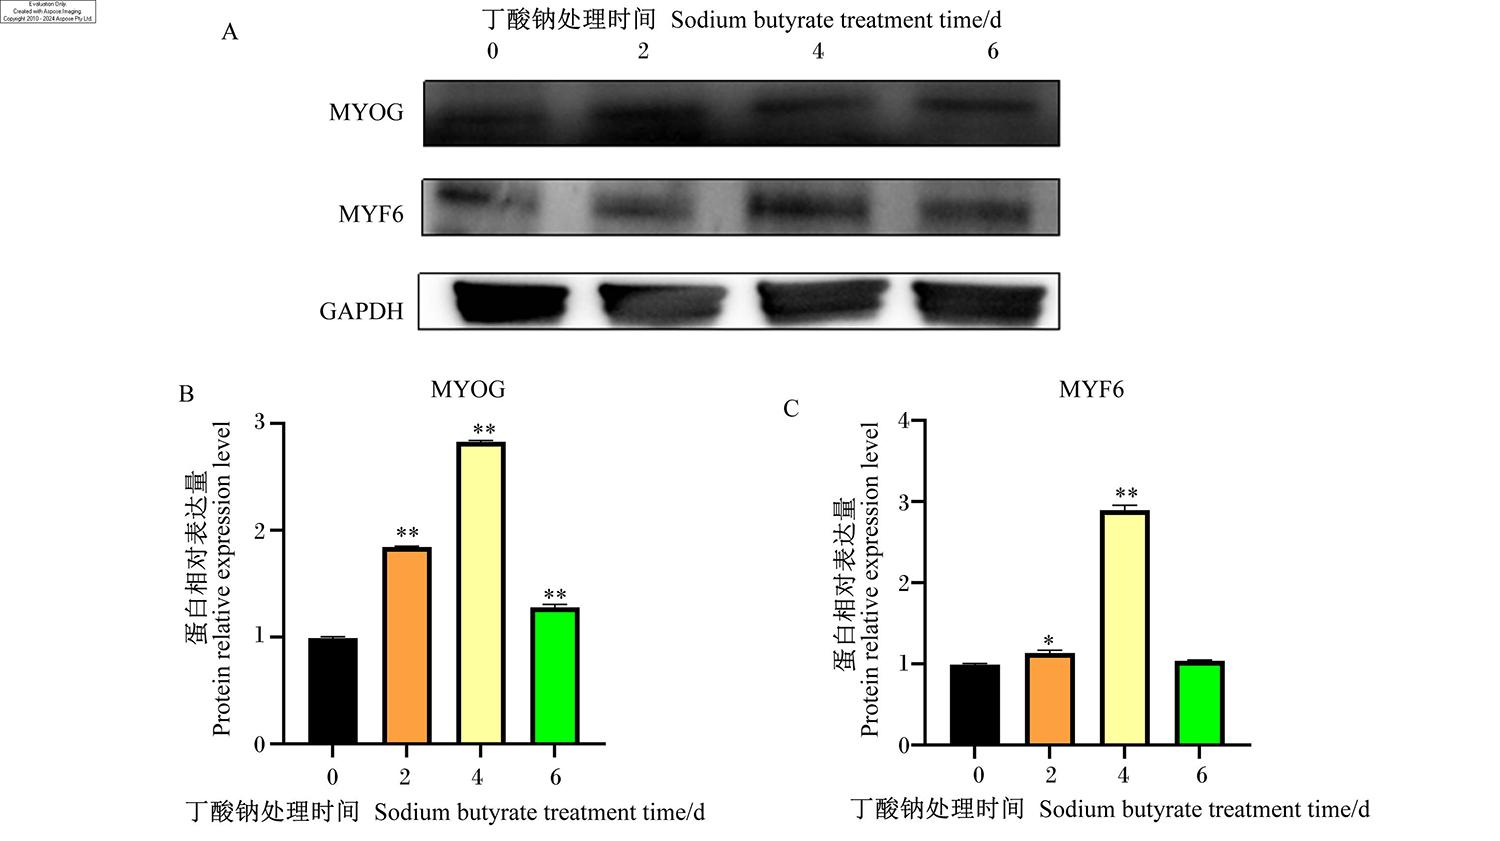
为了探究丁酸钠处理对牛SMSCs分化的影响,本试验用丁酸钠(1.0 mmol/L)处理被诱导分化的牛SMSCs,通过RT-qPCR和蛋白免疫印迹对分化标志基因MYOGMYF6的mRNA和蛋白相对表达量进行检测。如图2图3所示,与0 d相比,丁酸钠处理2、4、6 d后极显著上调MYOGMYF6的mRNA相对表达量(P<0.01),丁酸钠处理2、4、6 d后极显著上调MYOG的蛋白相对表达量(P<0.01),丁酸钠处理2 d后显著上调MYF6的蛋白相对表达量(P<0.05),丁酸钠处理4 d后极显著上调MYF6的蛋白相对表达量(P<0.01)。以上结果表明,丁酸钠处理可促进牛SMSCs的分化。
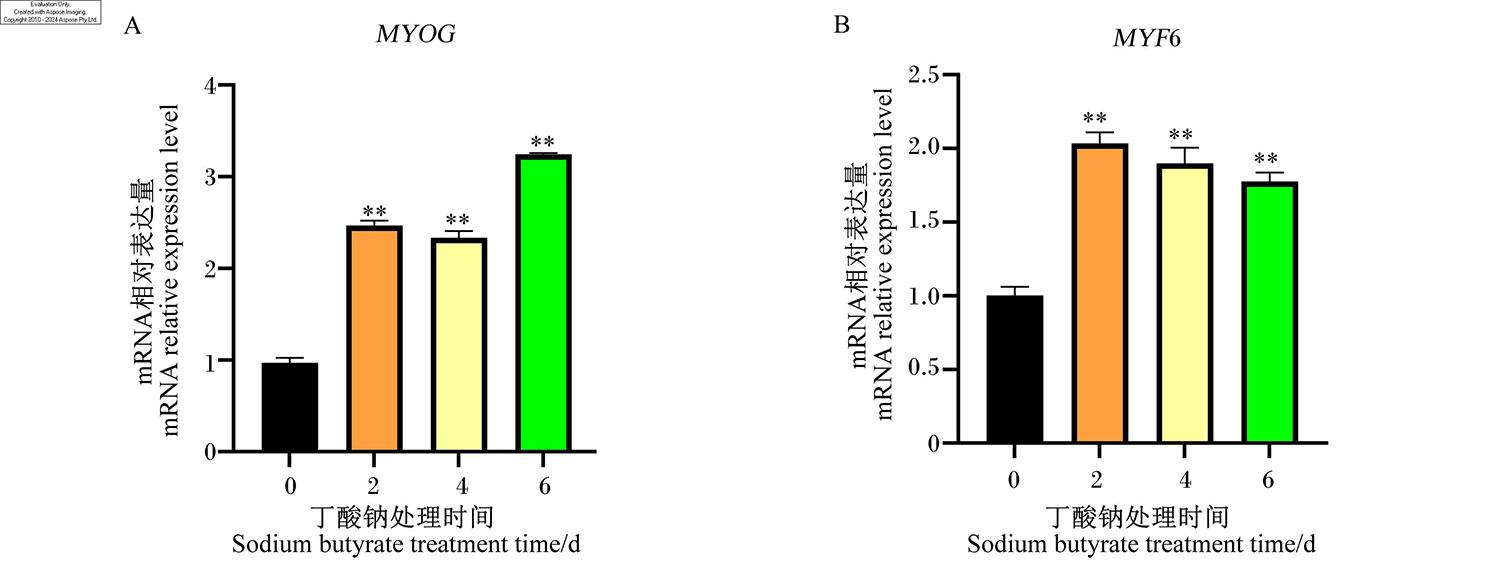
图2 丁酸钠处理在mRNA水平对牛SMSCs分化的影响

MYOG:肌细胞生成素 myogenic;MYF6:肌源性因子6 myogenic factor 6。图3图8同 the same as Fig.3 and Fig.8

Fig.2 Effects of sodium butyrate treatment on bovine SMSCs differentiation at mRNA level

图3 丁酸钠处理在蛋白水平对牛SMSCs分化的影响

GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde 3-phosphate dehydrogenase。图5图8图9同 the same as Fig.5, Fig.8 and Fig.9

Fig.3 Effects of sodium butyrate treatment on bovine SMSCs differentiation at protein level

2.3 丁酸钠处理对肌纤维类型转化的影响

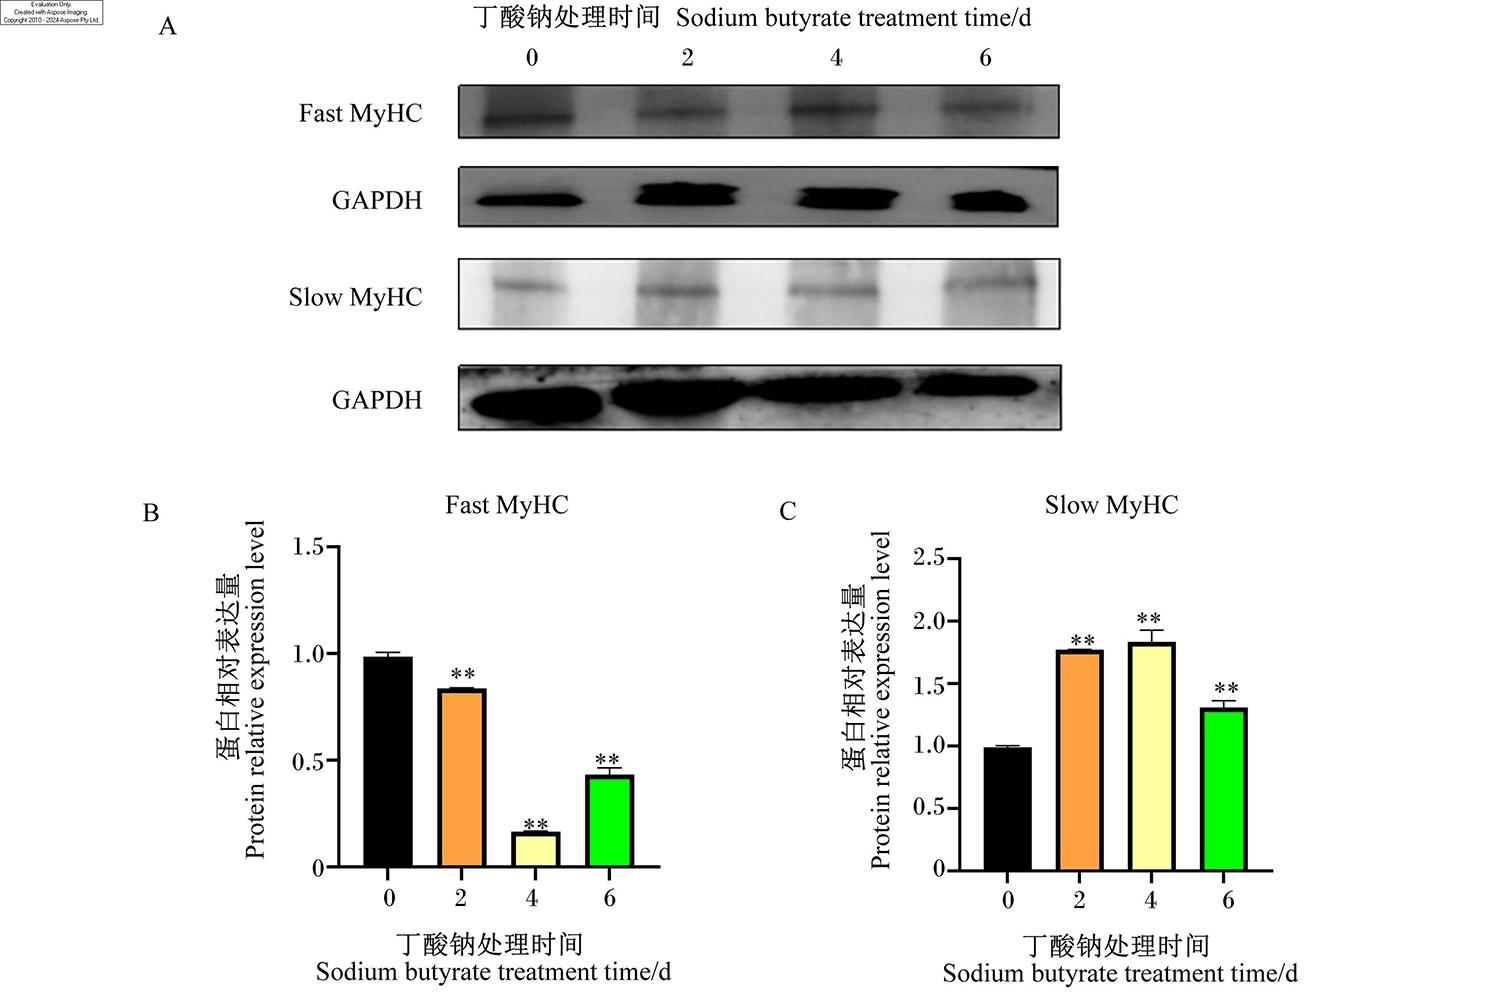
为了进一步明确丁酸钠处理对肌纤维类型转化的影响,本试验用丁酸钠(1.0 mmol/L)处理被诱导分化的牛SMSCs,通过RT-qPCR对肌纤维类型相关基因MyHCⅠ、MyHCaMyHCbMyHCx的mRNA相对表达量进行检测,通过蛋白免疫印迹对慢速MyHC和快速MyHC的蛋白相对表达量进行检测。如图4图5所示,与0 d相比,丁酸钠处理2、4 d后极显著上调MyHCⅠ、MyHCa的mRNA相对表达量(P<0.01),极显著下调MyHCb的mRNA相对表达量(P<0.01);丁酸钠处理6 d后极显著上调MyHCx的mRNA相对表达量(P<0.01);丁酸钠处理2、4、6 d后极显著上调慢速MyHC的蛋白相对表达量(P<0.01),极显著下调快速MyHC的蛋白相对表达量(P<0.01)。以上结果表明,丁酸钠处理可促进牛慢速肌纤维的形成。
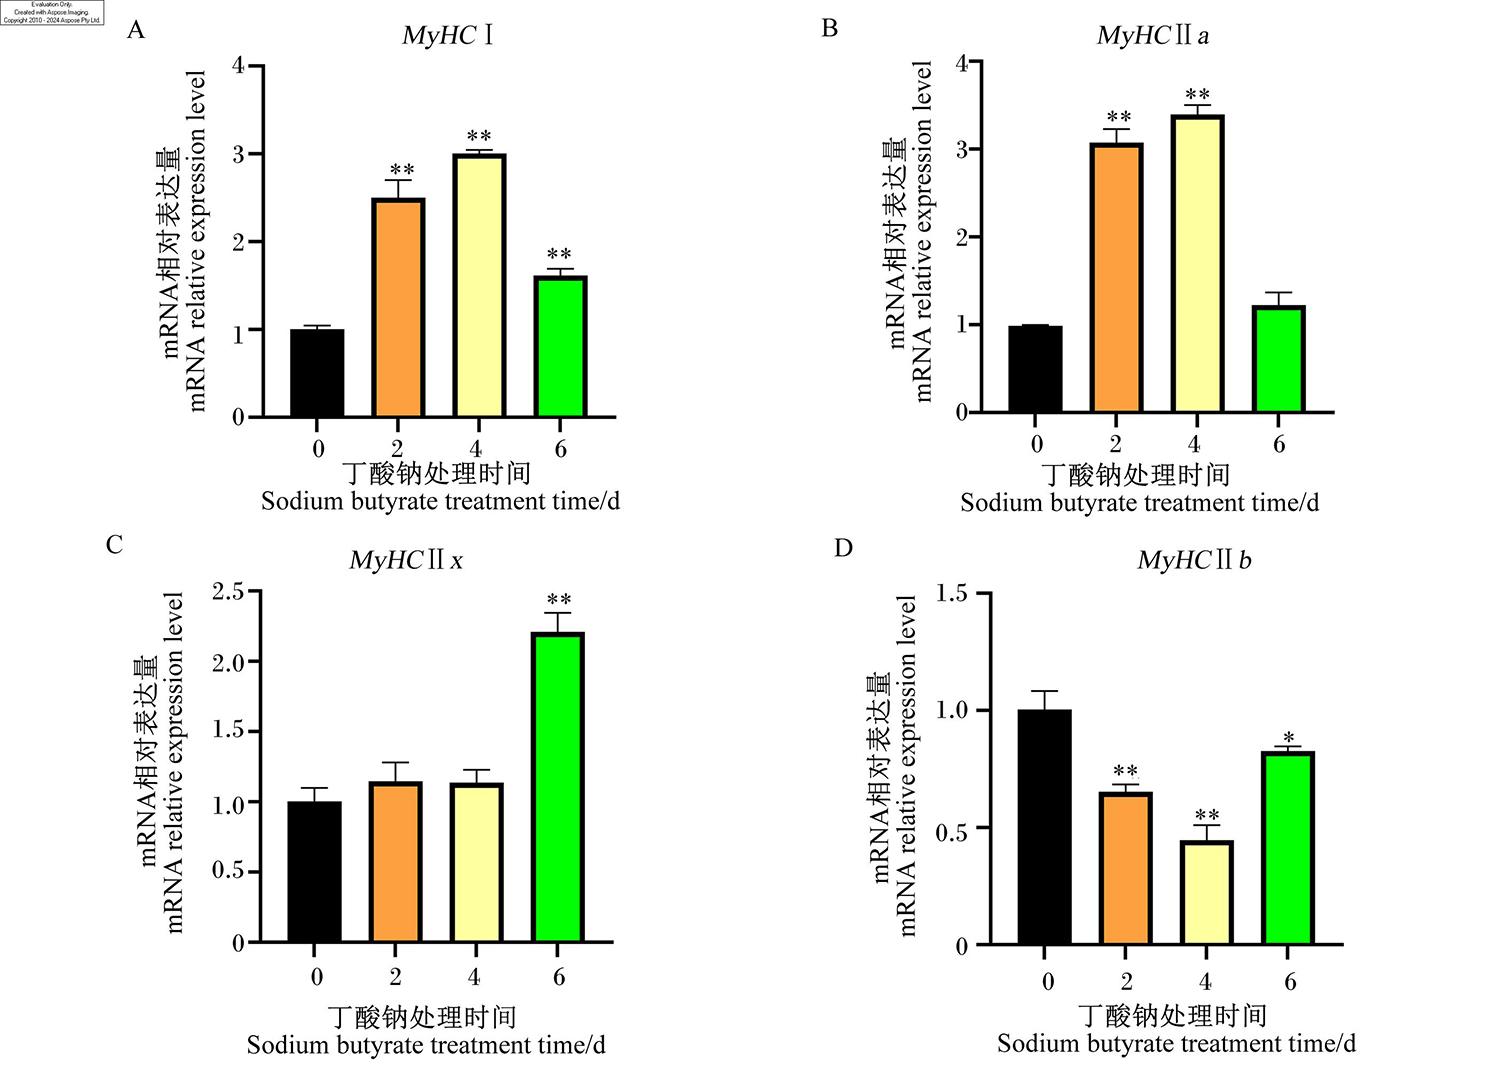
图4 丁酸钠处理在mRNA水平对肌纤维类型转化的影响

MyHCⅠ:肌球蛋白重链Ⅰ myosin heavy chain Ⅰ;MyHCa:肌球蛋白重链Ⅱa myosin heavy chain Ⅱa;MyHCx:肌球蛋白重链Ⅱx myosin heavy chain Ⅱx;MyHCb:肌球蛋白重链Ⅱb myosin heavy chain Ⅱb。图5图9同 the same as Fig.5 and Fig.9

Fig.4 Effects of sodium butyrate treatment on muscle fiber type transformation at mRNA level

图5 丁酸钠处理在蛋白水平对肌纤维类型转化的影响

Fast MyHC:快速肌球蛋白重链 fast myosin heavy chain;Slow MyHC:慢速肌球蛋白重链 slow myosin heavy chain。图9同 the same as Fig.9

Fig.5 Effects of sodium butyrate treatment on muscle fiber type transformation at protein level

2.4 丁酸钠处理对AMPK信号通路标志基因表达的影响

AMPK信号通路在骨骼肌细胞分化过程中发挥关键作用,为了探究丁酸钠处理是否能够激活AMPK信号通路,本试验用丁酸钠(1.0 mmol/L)处理被诱导分化的牛SMSCs,通过RT-qPCR对AMPK信号通路标志基因的mRNA相对表达量进行检测。如图6所示,与0 d相比,丁酸钠处理2、4 d后极显著上调AMPKα1、AMPKα2、SIRT1和PGC-1α的mRNA相对表达量(P<0.01)。以上结果表明,丁酸钠处理能够激活AMPK信号通路。
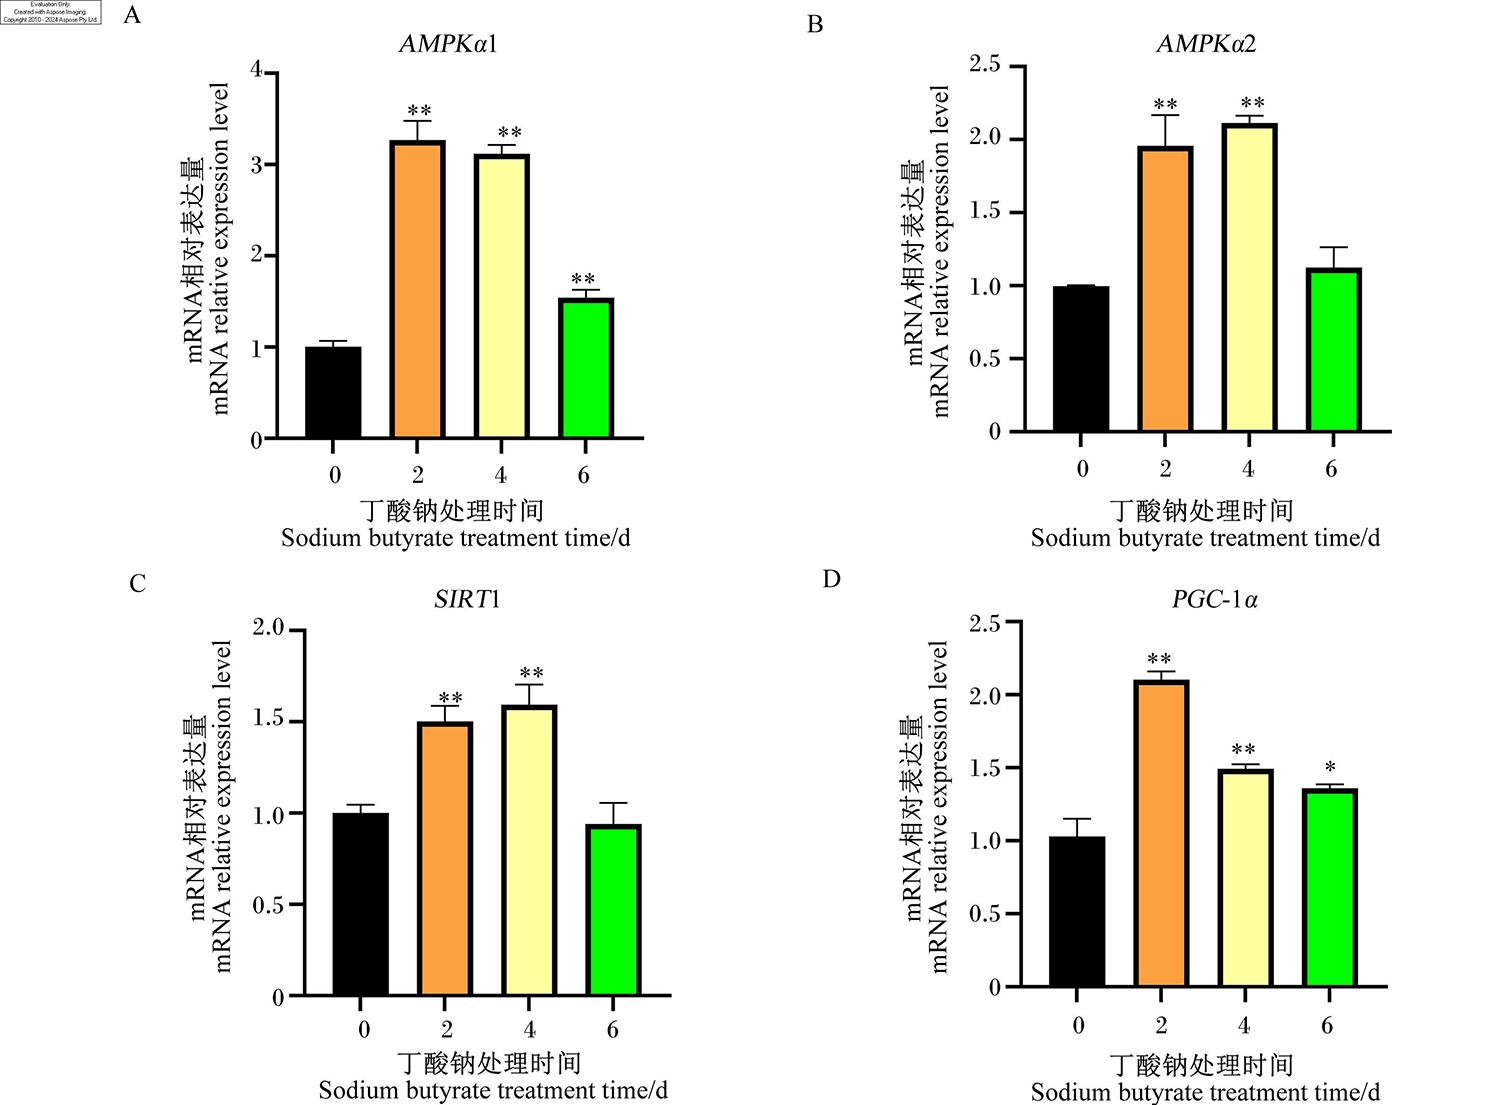
图6 丁酸钠处理对AMPK信号通路标志基因表达的影响

AMPKα1:单磷酸腺苷活化蛋白激酶 AMP-activated protein kinase α1;AMPKα2:单磷酸腺苷活化蛋白激酶 AMP-activated protein kinase α2;SIRT1:沉默信息调节因子1 silent information regulator 1;PGC-1α:过氧化物酶体增殖物激活受体-γ共激活因子-1α peroxisome proliferator activated receptor-γ coactivator-1α。图7同 the same as Fig.7

Fig.6 Effects of sodium butyrate treatment on expression of AMPK signaling pathway marker genes

2.5 丁酸钠通过AMPK信号通路调控牛SMSCs分化

为了明确丁酸钠通过AMPK信号通路来调控牛SMSCs分化,本试验采用AMPK信号通路抑制剂Compound C(5 μmol/L)和丁酸钠(1.0 mmol/L)处理牛骨骼肌细胞的诱导分化过程,通过RT-qPCR和蛋白免疫印迹对AMPK信号通路标志基因(AMPKα1、AMPKα2、SIRT1和PGC-1α)和肌肉分化标志基因(MYOGMYF6)的mRNA及其蛋白相对表达量进行检测。如图7所示,与对照组相比,抑制剂组AMPKα1、AMPKα2、SIRT1的mRNA相对表达量极显著下调(P<0.01),PGC-1α的mRNA相对表达量显著下调(P<0.05);与丁酸钠组相比,丁酸钠和抑制剂共处理组AMPKα2、SIRT1的mRNA相对表达量极显著下调(P<0.01),AMPKα1、PGC-1α的mRNA相对表达量显著下调(P<0.05)。以上结果表明,丁酸钠处理可促进AMPK信号通路标志基因的表达,而丁酸钠和AMPK信号通路抑制剂共处理则会降低丁酸钠对AMPK信号通路标志基因表达的促进作用。
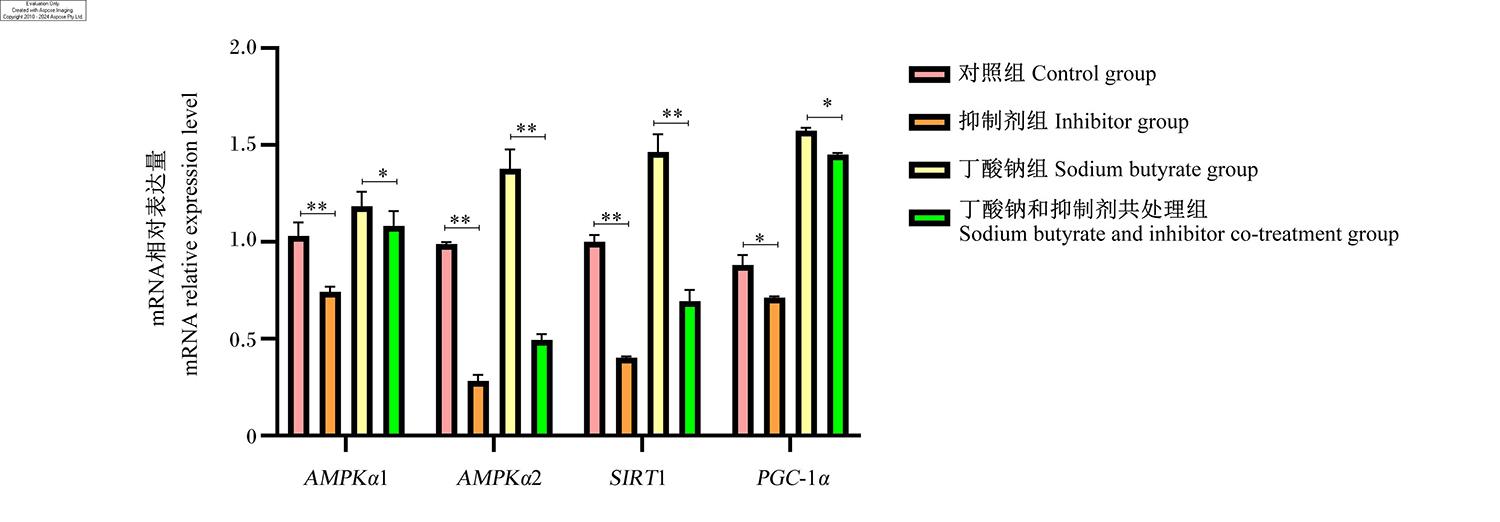
图7 丁酸钠和AMPK信号通路抑制剂处理对AMPK信号通路标志基因表达的影响

Fig.7 Effects of sodium butyrate and AMPK signaling pathway inhibitor treatment on expression of AMPK signaling pathway marker genes

图8所示,与对照组相比,抑制剂组MYF6、MYOG的mRNA相对表达量极显著下调(P<0.01),MYOG的蛋白相对表达量极显著下调(P<0.01),MYF6的蛋白相对表达量显著下调(P<0.05);与丁酸钠组相比,丁酸钠和抑制剂共处理组MYF6、MYOG的mRNA相对表达量极显著下调(P<0.01),MYOG、MYF6的蛋白相对表达量极显著下调(P<0.01)。以上结果表明,丁酸钠处理可促进肌肉分化标志基因的表达,而丁酸钠和AMPK通路抑制剂共处理则会降低丁酸钠对肌肉分化标志基因表达的促进作用,说明丁酸钠能够通过AMPK信号通路调控牛SMSCs分化。
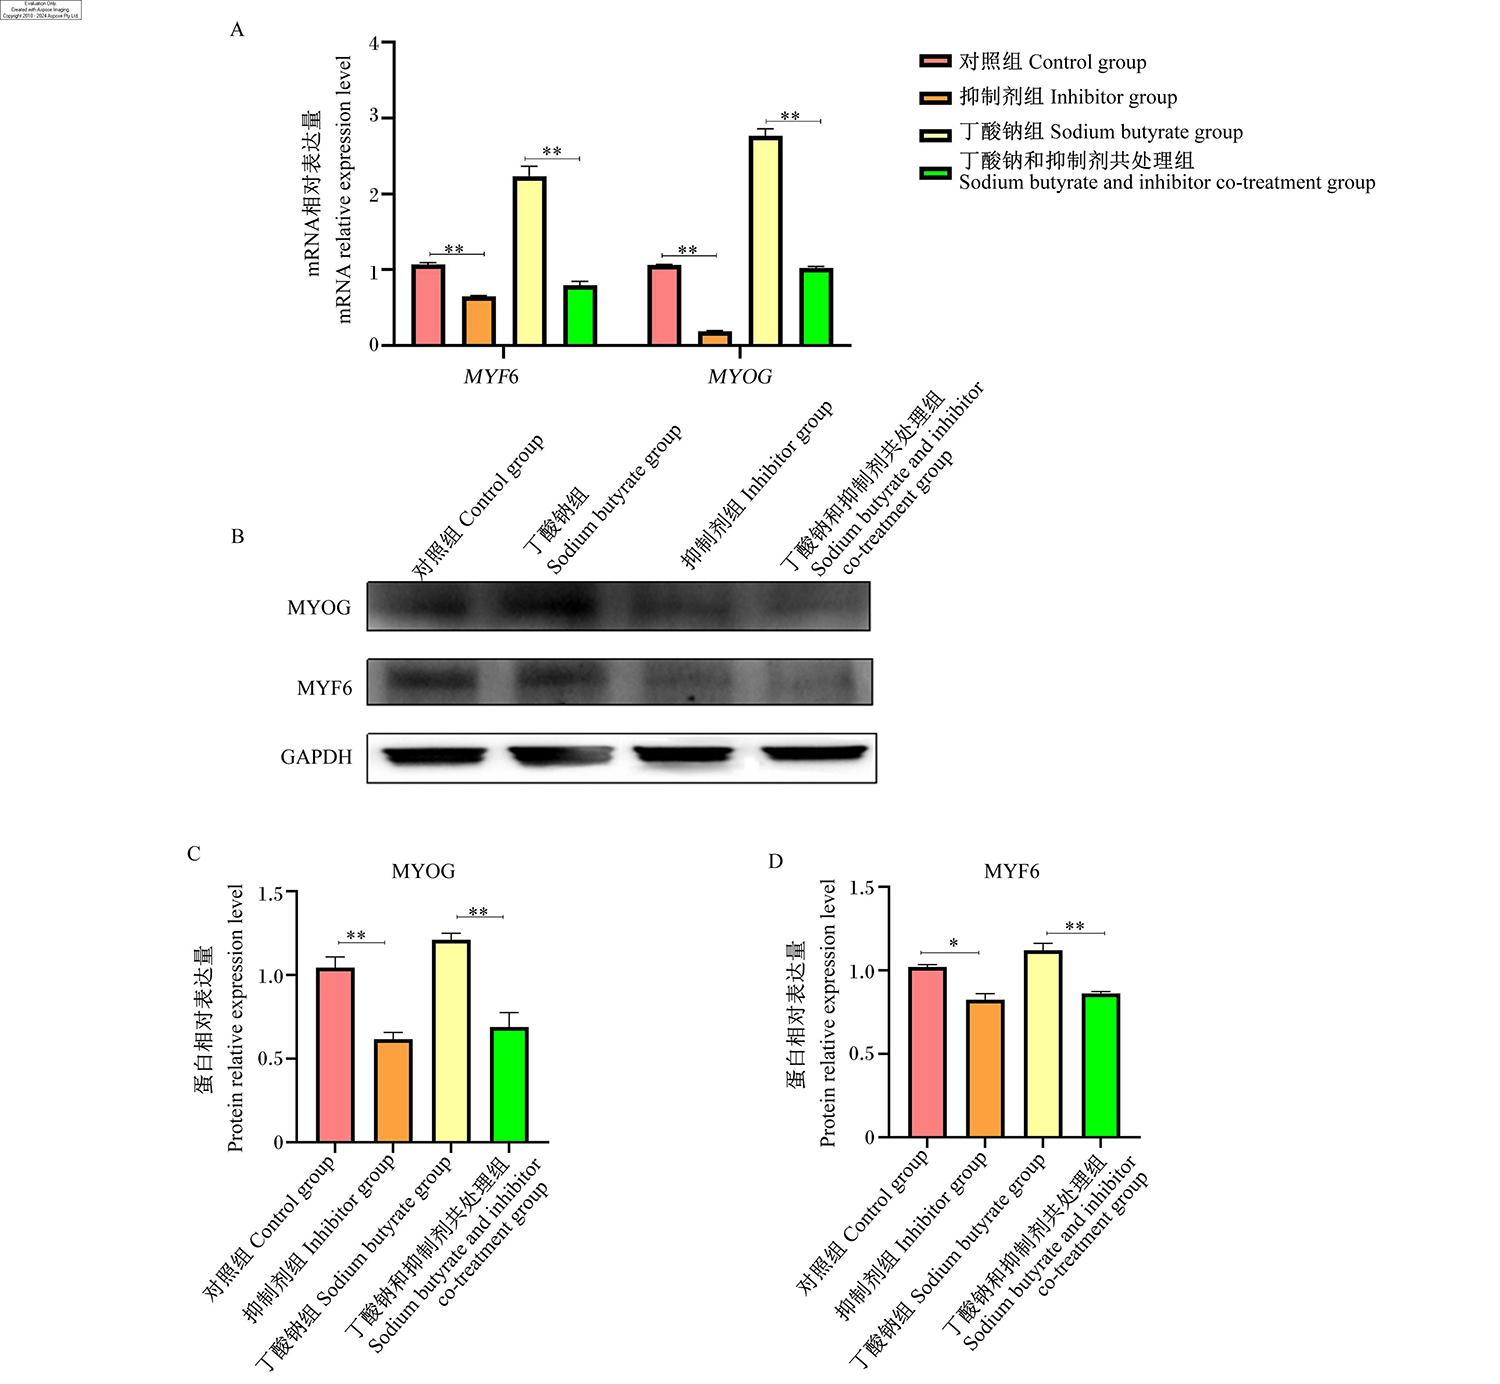
图8 丁酸钠和AMPK信号通路抑制剂处理对肌细胞分化标志基因表达的影响

Fig.8 Effects of sodium butyrate and AMPK signaling pathway inhibitor treatment on expression of myogenic differentiation marker genes

2.6 丁酸钠通过AMPK信号通路调控牛骨骼肌纤维转化

为了进一步明确丁酸钠通过AMPK信号通路介导调控牛骨骼肌纤维转化,本试验使用AMPK信号通路抑制剂Compound C(5 μmol/L)和丁酸钠(1.0 mmol/L)进行处理,提取细胞总蛋白和总RNA,通过蛋白免疫印迹和RT-qPCR对慢速MyHC、快速MyHC的蛋白相对表达量及MyHCⅠ、MyHCxMyHCaMyHCb的mRNA相对表达量进行检测。如图9所示,与对照组相比,抑制剂组MyHCⅠ、MyHCa的mRNA相对表达量极显著下调(P<0.01),MyHCb的mRNA相对表达量极显著上调(P<0.01),慢速MyHC的蛋白相对表达量显著下调(P<0.05),快速MyHC的蛋白相对表达量极显著上调(P<0.01);与丁酸钠组相比,丁酸钠和抑制剂共处理组MyHCⅠ、MyHCa的mRNA相对表达量极显著下调(P<0.01),MyHCb的mRNA相对表达量极显著上调(P<0.01),慢速MyHC的蛋白相对表达量显著下调(P<0.05),快速MyHC的蛋白相对表达量极显著上调(P<0.01)。以上结果表明,丁酸钠处理可促进MyHCⅠ、MyHCa的mRNA及慢速MyHC的蛋白表达,抑制了MyHCb的mRNA和快速MyHC的蛋白表达,而丁酸钠和AMPK信号通路抑制剂共处理则会缓解丁酸钠以上作用,说明丁酸钠能够通过AMPK信号通路调控牛骨骼肌纤维转化。
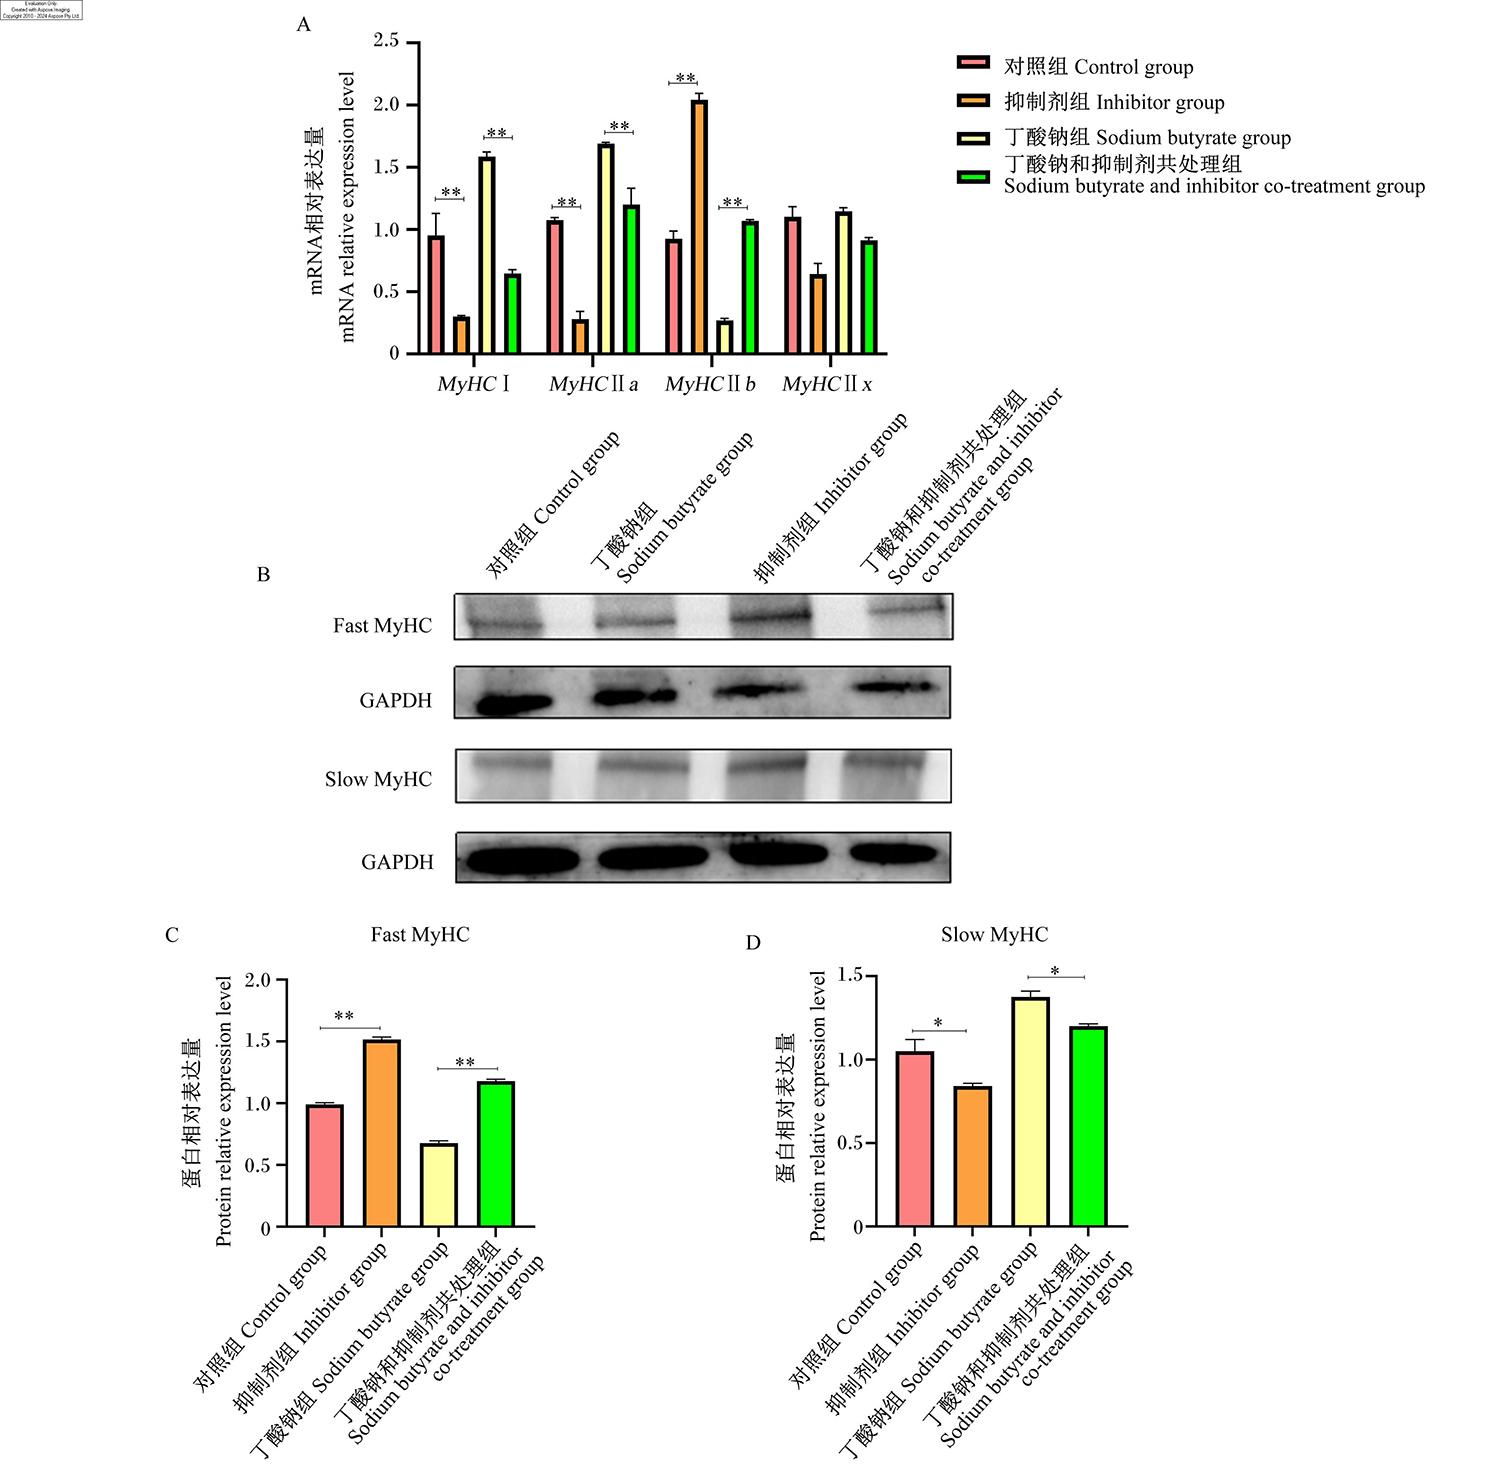
图9 丁酸钠和AMPK信号通路抑制剂处理对肌纤维类型转化标志基因表达的影响

Fig.9 Effects of sodium butyrate and AMPK signaling pathway inhibitor treatment on expression of muscle fiber type transformation marker genes

3 讨论

丁酸钠作为一种小分子代谢物,主要发挥组蛋白乙酰化修饰作用,并已在人类临床疾病模型中进行了广泛报道[32]。在畜牧行业,丁酸钠通常作为一种功能性添加剂在畜禽饲养中被用于提高家畜生长性能。研究表明,饲粮中添加丁酸钠(3 g/kg)的仔猪,其体重显著高于仅饲喂基础饲粮的仔猪,且仔猪体重的增加与饲粮中丁酸钠的添加剂量呈正相关关系[33-34];饲粮中添加丁酸钠(100、200和300 g/d)可通过调控奶牛瘤胃发酵、营养物质消化以及与乳脂合成和乳腺发育有关的基因和蛋白质表达来增加产奶量和乳脂合成,从而提高泌乳性能,且丁酸钠的添加剂量与相关基因表达呈剂量梯度效应[35]。在细胞水平,通过丁酸钠处理细胞也被用于体外试验的验证,如在猪的空肠上皮细胞中添加1、2、4、8 mmol/L的丁酸钠增强了肠道屏障完整性,减少了肿瘤坏死因子-α(TNF-α)等炎症因子的产生[36],其中8 mmol/L丁酸钠处理效果较为理想;添加0.5 mmol/L丁酸钠处理猪SMSCs,可下调配对盒基因7(Pax7)和MYOD基因表达,改变组蛋白H3第27位赖氨酸三甲基化(H3K27me3)的表观修饰,促进SMSCs进入分化程序[37];添加1 mmol/L的丁酸钠处理鸡脂肪细胞,丁酸钠通过抑制组蛋白去乙酰化酶活性,增大脂肪细胞中脂滴的体积,进而促进鸡的脂肪沉积[38],本试验通过添加1.0 mmol/L丁酸钠处理牛SMSCs发现,丁酸钠处理促进了牛SMSCs分化和慢速肌纤维的生成,表明利用丁酸钠在细胞水平进行诱导处理畜禽不同类型细胞的浓度剂量具有相似性,但不完全一致,这种差异反映出丁酸钠处理不同类型细胞具有跨物种跨组织的多样性,同时不同类型细胞对丁酸钠处理可能具有特定应答条件。
SMSCs的分化对骨骼肌的肌管生成及发育进程起着重要的调控作用,SMSCs的分化受多因素调节(包括MYOGMYF6等肌肉分化标志基因的调控),在细胞生物学层面,MYOG和MYF6作为调控肌肉发育的关键因子,参与调控肌细胞的融合和肌管的形成,直接影响肌肉的生长发育过程[39-40]。有研究表明,MYOGMYF6常被作为肌肉分化标志基因在哺乳动物成肌细胞分化研究中被检测[41-42];在绵羊成肌细胞分化过程中,MYOGMYF6的表达呈现差异化,MYOG的表达呈现出先上升后下降的变化趋势,而MYF6的表达呈现上升趋势[43]。此外,MYF6不仅参与肌细胞的终末分化和骨骼肌表型的维持,还在收缩性肌纤维的组装过程中发挥重要功能,在C2C12细胞分化过程中,miR-374b能够直接靶向MYF6并对其表达进行负向调控,进而影响C2C12细胞的分化[44-45]。本试验通过对MYOGMYF6表达的变化进行检测以确定丁酸钠处理在牛SMSCs分化过程中发挥的作用,结果表明,丁酸钠诱导处理牛SMSCs上调了MYOGMYF6的表达,提示丁酸钠处理可诱导牛SMSCs分化,同时SMSCs中MYOGMYF6表达对丁酸钠诱导处理具体特定应答特征。
AMPK信号通路(AMPK/SIRT1/PGC-1α)作为关键的代谢调控枢纽,广泛参与细胞增殖、分化与凋亡等多个生物学进程,对肌肉的生长发育起着重要的调节作用。有研究表明,在C2C12细胞模型中,细胞分化和肌管生成均受到二氧双胍的调控,而这一调控作用依赖于AMPK信号通路的介导[46];相似研究同样表明,西洋参和韩国栽培山参的药针提取物以及乳酸盐均能有效促进C2C12细胞的分化,其作用机制涉及AMPK信号通路的激活,AMPK信号通路激活可进一步上调肌管中MYOD等关键分化标志基因的表达[47-48];SIRT1在骨骼肌的发育、修复等生理过程中发挥重要的作用,SIRT1缺失会导致肌肉再生障碍,与肌肉发育相关的基因(MYOG等)异常表达[49-50];PGC-1α与成肌细胞的分化有关,可上调成肌细胞中MYODMYOG等肌肉分化标志基因的表达[51]。上述研究结果表明,AMPK信号通路能够参与调控肌细胞的分化。本试验通过外源添加AMPK信号通路抑制剂处理,结果显示,肌肉分化标志基因(MYOGMYF6)及SIRT1、PGC-1α的表达下调,而丁酸钠和抑制剂共处理则可缓解通路抑制剂对牛SMSCs分化的抑制作用,这与前人研究结果相似,提示丁酸钠处理后通过激活AMPK信号通路(上调SIRT1和PGC-1α的表达)促进肌肉分化标志基因MYOGMYF6的表达,进而诱导牛SMSCs分化,表明丁酸钠诱导处理牛SMSCs分化可能通过激活AMPK信号通路实现。
在畜禽生产中,骨骼肌的产量和品质是2项关键的经济指标,肌纤维的发育状况直接关联着肌肉质地的差异,而其组织化学和生化特性更是影响肉品质的核心因素[22,52],深入理解肌纤维特性与肉品质性状之间的内在关联,将直接推动优质肉品生产水平的提升。牛肉的大理石花纹丰富度及嫩度的提升与肌肉中特定的肌纤维类型比例密切相关,当肌纤维中Ⅰ型肌纤维的比例相对较高而ⅡB型肌纤维的比例相对较低时,会有助于形成上述肉品质[53];在猪的生长过程中,肌纤维类型的比例呈现规律性变化,随着日龄增加,氧化型肌纤维(Ⅰ型、Ⅱa型)的比例逐渐降低,而糖酵解型肌纤维(Ⅱb型、Ⅱx型)的比例则相应升高,进一步研究发现,肌纤维直径的大小与MyHC亚型的表达存在特定关联,其与MyHCⅠ的表达呈现正相关,而与MyHCbMyHCx的表达则呈负相关[54],MyHCx是肌纤维类型连续转化谱中的关键节点亚型,是判断肌肉代谢表型转换方向的重要标志。当人类肌肉组织中MyHCx处于高表达状态且个体受到训练刺激时,机体中MyHCx会优先向氧化能力更强的MyHCa转换。研究显示,对静坐少动男性进行大负荷抗阻训练可显著降低MyHCⅡx含量,同时增加了MyHCⅡa含量[55]。本试验通过外源添加丁酸钠探究其对肌纤维类型转化的影响,结果显示,丁酸钠处理上调了MyHCⅠ、MyHCa的基因和慢速MyHC的蛋白表达,下调了MyHCb的基因快速MyHC的蛋白表达,表明丁酸钠处理可促进慢速肌纤维的生成,同时在丁酸钠处理第6天时MyHCx的表达上调且MyHCa的表达下调,与前人研究类似,表明MyHCⅡx不论在组织训练刺激或细胞水平的小分子物质(丁酸钠)刺激均有可能向MyHCⅡa进行转换的潜力,但丁酸钠处理后的MyHCxMyHCa表达变化规律需要后续更长的诱导处理时间(大于6 d)才能明确。
AMPK活性与肌肉功能的维持密切相关,其活性可根据不同肌纤维类型的能量需求进行适应性调节[56]。研究表明,芍药苷能够通过AMPK(AMPK/SIRT1/PGC-1α)信号通路改善氧化应激和线粒体功能障碍来调控肌肉萎缩及肌分化相关蛋白的表达,同时敲低PGC-1α逆转了芍药苷对肌肉萎缩、氧化应激和线粒体功能障碍的保护作用[57];在应激条件下,肌酸通过促进AMPK信号通路激活并诱导PGC-1α的表达上调,对维持C2C12细胞分化及恢复正常的肌生成功能可能具有重要作用[58];芝麻酚可通过激活肌肉SIRT1/AMPK信号通路,调控肌纤维由Ⅱ型向Ⅰ型转换,进而对肥胖小鼠的代谢紊乱起着改善的作用[59];在小鼠模型中,柚皮苷可诱导肌纤维类型发生转化,这一过程依赖于柚皮苷对AMPK/PGC-1α信号通路的激活与调控,PGC-1α作为AMPK的下游效应分子,介导柚皮苷诱导的骨骼肌纤维类型从Ⅱ型(快肌/糖酵解型)向Ⅰ型(慢肌/氧化型)转化[60];此外,PGC-1α还可作为纤维细胞生长因子21(FGF21)-SIRT1-AMPK信号通路的关键下游效应分子,通过激活线粒体基因表达,增强脂肪酸氧化能力,促进肌纤维的氧化适应性重塑[61]。因此,本试验通过外源添加AMPK信号通路抑制剂处理,结果显示,抑制剂处理抑制了慢速肌纤维的生成,促进了快速肌纤维的生成,下调了PGC-1αMyHCⅠ、MyHCa的表达,而丁酸钠和抑制剂共处理则缓解了AMPK通路抑制剂对慢速肌纤维的抑制作用和快速肌纤维的促进作用,提示AMPK信号通路在丁酸钠诱导牛肌纤维类型转化中发挥重要的调控作用,丁酸钠通过激活AMPK信号通路(AMPK/SIRT1/PGC-1α)上调PGC-1α等与氧化代谢相关基因的表达,促进MyHCⅠ、MyHCa的表达,进而诱导慢速肌纤维的形成。

4 结论

外源添加1.0 mmol/L丁酸钠促进了牛SMSCs分化及肌纤维类型的转化过程,而丁酸钠的这种调控作用可能通过介导AMPK信号通路(AMPK/SIRT1/PGC-1α)实现,为通过添加外源小分子营养物质调控畜禽肉品质提供了理论参考与支撑。
[1]
熊明福, 孔思远, 张永生. 单细胞及空间组学技术:解析动物骨骼肌发育进程[J]. 中国生物化学与分子生物学报, 2025, 41(11):1566-1578.

XIONG M F, KONG S Y, ZHANG Y S. Single-cell and spatial omics technologies:deciphering the process of animal skeletal muscle development[J]. Chinese Journal of Biochemistry and Molecular Biology, 2025, 41(11):1566-1578. (in Chinese)

[2]
CARVAJAL J J, RIGBY P W J. Regulation of gene expression in vertebrate skeletal muscle[J]. Experimental Cell Research, 2010, 316(18):3014-3018.

[3]
ZHAO L, HUANG Y, DU M. Farm animals for studying muscle development and metabolism:dual purposes for animal production and human health[J]. Animal Frontiers, 2019, 9(3):21-27.

[4]
YIN H, PRICE F, RUDNICKI M A. Satellite cells and the muscle stem cell niche[J]. Physiological Reviews, 2013, 93(1):23-67.

[5]
KNAPP J R, DAVIE J K, MYER A, et al. Loss of myogenin in postnatal life leads to normal skeletal muscle but reduced body size[J]. Development, 2006, 133(4):601-610.

[6]
LYU P C, SETTLAGE R, JIANG H L. Identification of Fos and FosB as transcriptional regulators of bovine satellite cell differentiation[J]. Journal of Animal Science, 2021, 99(S3):103.

[7]
KOPANTSEVA E E, BELYAVSKY A V. Key regulators of skeletal myogenesis[J]. Molecular Biology, 2016, 50(2):169-192.

[8]
HERNÁNDEZ-HERNÁNDEZ J M, GARCÍA-GONZÁLEZ E G, BRUN C E, et al. The myogenic regulatory factors,determinants of muscle development,cell identity and regeneration[J]. Seminars in Cell & Developmental Biology, 2017, 72:10-18.

[9]
YAMAMOTO M, LEGENDRE N P, BISWAS A A, et al. Loss of MyoD and Myf5 in skeletal muscle stem cells results in altered myogenic programming and failed regeneration[J]. Stem Cell Reports, 2018, 10(3):956-969.

[10]
付玉, 张博, 凌遥, 等. 骨骼肌生长发育过程及调控研究现状[J]. 中国畜牧兽医, 2021, 48(10):3565-3574.

FU Y, ZHANG B, LING Y, et al. Reviews on process and regulation of skeletal muscle growth and development[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(10):3565-3574. (in Chinese)

[11]
SAWANO S, MIZUNOYA W. History and development of staining methods for skeletal muscle fiber types[J]. Histology and Histopathology, 2022, 37(6):493-503.

[12]
SCHIAFFINO S. Fibre types in skeletal muscle:a personal account[J]. Acta Physiologica, 2010, 199(4):451-463.

[13]
VAN WESSEL T, DE HAAN A, VAN DER LAARSE W J, et al. The muscle fiber type-fiber size paradox:hypertrophy or oxidative metabolism?[J]. European Journal of Applied Physiology, 2010, 110(4):665-694.

[14]
GUEGUEN N, LEFAUCHEUR L, ECOLAN P, et al. Ca2+-activated myosin-ATPases,creatine and adenylate kinases regulate mitochondrial function according to myofibre type in rabbit[J]. The Journal of Physiology, 2005, 564(3):723-735.

[15]
LEFAUCHEUR L. A second look into fibre typing-relation to meat quality[J]. Meat Science, 2010, 84(2):257-270.

[16]
NIE C T, HU Y Q, CHEN R R, et al. Effect of probiotics and Chinese medicine polysaccharides on meat quality,muscle fibre type and intramuscular fat deposition in lambs[J]. Italian Journal of Animal Science, 2022, 21(1):811-820.

[17]
HARDIE D G, ROSS F A, HAWLEY S A. AMPK:a nutrient and energy sensor that maintains energy homeostasis[J]. Nature Reviews Molecular Cell Biology, 2012, 13(4):251-262.

[18]
FULCO M, CEN Y N, ZHAO P, et al. Glucose restriction inhibits skeletal myoblast differentiation by activating SIRT1 through AMPK-mediated regulation of nampt[J]. Developmental Cell, 2008, 14(5):661-673.

[19]
MENG Q H, QI X, FU Y, et al. Flavonoids extracted from mulberry (Morus alba L.) leaf improve skeletal muscle mitochondrial function by activating AMPK in type 2 diabetes[J]. Journal of Ethnopharmacology, 2020, 248:112326.

[20]
CHEN X L, GUO Y F, JIA G, et al. Ferulic acid regulates muscle fiber type formation through the Sirt1/AMPK signaling pathway[J]. Food & Function, 2019, 10(1):259-265.

[21]
WEN W X, CHEN X L, HUANG Z Q, et al. Lycopene increases the proportion of slow-twitch muscle fiber by AMPK signaling to improve muscle anti-fatigue ability[J]. The Journal of Nutritional Biochemistry, 2021, 94:108750.

[22]
WANG X, XIAO K, JIANG G Z, et al. Dietary 18-carbon fatty acid unsaturation improves the muscle fiber development and meat quality of Megalobrama amblycephala[J]. Aquaculture Reports, 2022, 24:101127.

[23]
FRAMPTON J, MURPHY K G, FROST G, et al. Short-chain fatty acids as potential regulators of skeletal muscle metabolism and function[J]. Nature Metabolism, 2020, 2(9):840-848.

[24]
TANG G, DU Y, GUAN H C, et al. Butyrate ameliorates skeletal muscle atrophy in diabetic nephropathy by enhancing gut barrier function and FFA2-mediated PI3K/Akt/mTOR signals[J]. British Journal of Pharmacology, 2022, 179(1):159-178.

[25]
DANG G Q, WU W D, ZHANG H F, et al. A new paradigm for a new simple chemical:butyrate & immune regulation[J]. Food & Function, 2021, 12(24):12181-12193.

[26]
ZHANG K, MENG M J, GAO L P, et al. Sodium butyrate improves high-concentrate-diet-induced impairment of ruminal epithelium barrier function in goats[J]. Journal of Agricultural and Food Chemistry, 2018, 66(33):8729-8736.

[27]
RODE J, YANG L, KÖNIG J, et al. Butyrate rescues oxidative stress-induced transport deficits of tryptophan:potential implication in affective or gut-brain axis disorders[J]. Neuropsychobiology, 2021, 80(3):253-263.

[28]
SUGIHARTO S, YUDIARTI T, ISROLI I, et al. Effect of dietary supplementation of formic acid,butyric acid or their combination on carcass and meat characteristics of broiler chickens[J]. Journal of the Indonesian Tropical Animal Agriculture, 2019, 44(3):286-294.

[29]
HENAGAN T M, STEFANSKA B, FANG Z D, et al. Sodium butyrate epigenetically modulates high-fat diet-induced skeletal muscle mitochondrial adaptation,obesity and insulin resistance through nucleosome positioning[J]. British Journal of Pharmacology, 2015, 172(11):2782-2798.

[30]
ZHANG Y, YU B, YU J, et al. Butyrate promotes slow-twitch myofiber formation and mitochondrial biogenesis in finishing pigs via inducing specific microRNAs and PGC-1α expression[J]. Journal of Animal Science, 2019, 97(8):3180-3192.

[31]
DING Y L, WANG P F, LI C L, et al. Sodium butyrate induces mitophagy and apoptosis of bovine skeletal muscle satellite cells through the mammalian target of rapamycin signaling pathway[J]. International Journal of Molecular Sciences, 2023, 24(17):13474.

[32]
XI Y, JING Z, WEI W, et al. Inhibitory effect of sodium butyrate on colorectal cancer cells and construction of the related molecular network[J]. BMC Cancer, 2021, 21(1):127.

[33]
HANCZAKOWSKA E, NIWIŃSKA B, GRELA E R, et al. Effect of dietary glutamine,glucose and/or sodium butyrate on piglet growth,intestinal environment,subsequent fattener performance,and meat quality[J]. Czech Journal of Animal Science, 2014, 59(10):460-470.

[34]
ZHAO J B, LIU P, WU Y, et al. Dietary fiber increases butyrate-producing bacteria and improves the growth performance of weaned piglets[J]. Journal of Agricultural and Food Chemistry, 2018, 66(30):7995-8004.

[35]
ZHANG J, BU L J, LIU Y P, et al. Dietary supplementation of sodium butyrate enhances lactation performance by promoting nutrient digestion and mammary gland development in dairy cows[J]. Animal Nutrition, 2023, 15:137-148.

[36]
KOVANDA L, HEJNA M, DU T N, et al. Butyrate derivatives exhibited anti-inflammatory effects and enhanced intestinal barrier integrity in porcine cell culture models[J]. Animals, 2025, 15(9):1289.

[37]
MURRAY R L, ZHANG W, LIU J N, et al. Tributyrin,a butyrate pro-drug,primes satellite cells for differentiation by altering the epigenetic landscape[J]. Cells, 2021, 10(12):3475.

[38]
ZHAO L Q, LIU S, ZHANG Z H, et al. Low and high concentrations of butyrate regulate fat accumulation in chicken adipocytes via different mechanisms[J]. Adipocyte, 2020, 9(1):120-131.

[39]
SOUSA-JUNIOR L P B, MEIRA A N, AZEVEDO H C, et al. Variants in myostatin and MyoD family genes are associated with meat quality traits in Santa Inês sheep[J]. Animal Biotechnology, 2022, 33(2):201-213.

[40]
WYSZYŃSKA-KOKO J, PIERZCHAŁA M, FLISIKOWSKI K, et al. Polymorphisms in coding and regulatory regions of the porcine MYF6 and MYOG genes and expression of the MYF6 gene in m. longissimus dorsi versus productive traits in pigs[J]. Journal of Applied Genetics, 2006, 47(2):131-138.

[41]
LI A Q, SU X T, TIAN Y, et al. Effect of actin alpha cardiac muscle 1 on the proliferation and differentiation of bovine myoblasts and preadipocytes[J]. Animals, 2021, 11(12):3468.

[42]
CHEN S J, NIU S, WANG W N, et al. Overexpression of the QKI gene promotes differentiation of goat myoblasts into myotubes[J]. Animals, 2023, 13(4):725.

[43]
WANG H J, DOU M M, LI J, et al. Expression patterns and correlation analyses of muscle-specific genes in the process of sheep myoblast differentiation[J]. In Vitro Cellular & Developmental Biology:Animal, 2022, 58(9):798-809.

[44]
WANG Y H, LI C K, LEE G H, et al. Inactivation of zebrafish mrf4 leads to myofibril misalignment and motor axon growth disorganization[J]. Developmental Dynamics, 2008, 237(4):1043-1050.

[45]
MA Z Y, SUN X R, XU D Q, et al.MicroRNA,miR-374b,directly targets Myf6 and negatively regulates C2C12 myoblasts differentiation[J]. Biochemical and Biophysical Research Communications, 2015, 467(4):670-675.

[46]
MANISCALCO E, ABBADESSA G, GIORDANO M, et al. Metformin regulates myoblast differentiation through an AMPK-dependent mechanism[J]. PLoS One, 2023, 18(2):e0281718.

[47]
HWANG J H, KANG S Y, JUNG H W. Effects of American wild ginseng and Korean cultivated wild ginseng pharmacopuncture extracts on the regulation of C2C12 myoblasts differentiation through AMPK and PI3K/Akt/mTOR signaling pathway[J]. Molecular Medicine Reports, 2022, 25(6):192.

[48]
ZHOU Y, LIU X, HUANG C H, et al. Lactate activates AMPK remodeling of the cellular metabolic profile and promotes the proliferation and differentiation of C2C12 myoblasts[J]. International Journal of Molecular Sciences, 2022, 23(22):13996.

[49]
RADAK Z, SUZUKI K, POSA A, et al. The systemic role of SIRT1 in exercise mediated adaptation[J]. Redox Biology, 2020, 35:101467.

[50]
RYALL J G, DELL’ORSO S, DERFOUL A, et al. The NAD+-dependent SIRT1 deacetylase translates a metabolic switch into regulatory epigenetics in skeletal muscle stem cells[J]. Cell Stem Cell, 2015, 16(2):171-183.

[51]
ZHAO Y Y, LI R W, LIN Y Q, et al. PGC-1α is associated with Schizothorax prenanti myoblast differentiation[J]. Journal of Applied Animal Research, 2018, 46(1):1242-1246.

[52]
STUPKA R, ČÍTEK J, ŠPRYSL M, et al. Histological characteristics of the musculus longissimus lumborum et thoracis muscle fibres in pigs in relation to selected RYR1,MYOG,MYOD1 and MYF6 genotypes[J]. Acta Veterinaria Brno, 2014, 83(3):233-237.

[53]
HWANG Y H, KIM G D, JEONG J Y, et al. The relationship between muscle fiber characteristics and meat quality traits of highly marbled Hanwoo (Korean native cattle) steers[J]. Meat Science, 2010, 86(2):456-461.

[54]
GUO X H, WU Y Q, WANG Y Y, et al. MyHCs developmental expression patterns and its effect on muscle fibre characteristics in pig[J]. Journal of Applied Animal Research, 2020, 48(1):176-183.

[55]
ANDERSEN J L, AAGAARD P. Myosin heavy chain ⅡX overshoot in human skeletal muscle[J]. Muscle & Nerve, 2000, 23(7):1095-1104.

[56]
PARK S K, SHEFFLER T L, SPURLOCK M E, et al. Chronic activation of 5'-AMP-activated protein kinase changes myosin heavy chain expression in growing pigs[J]. Journal of Animal Science, 2009, 87(10):3124-3133.

[57]
LI Q, WU J, HUANG J W, et al. Paeoniflorin ameliorates skeletal muscle atrophy in chronic kidney disease via AMPK/SIRT1/PGC-1α-mediated oxidative stress and mitochondrial dysfunction[J]. Frontiers in Pharmacology, 2022, 13:859723.

[58]
BARBIERI E, GUESCINI M, CALCABRINI C, et al. Creatine prevents the structural and functional damage to mitochondria in myogenic,oxidatively stressed C2C12 cells and restores their differentiation capacity[J]. Oxidative Medicine and Cellular Longevity, 2016, 2016(1):5152029.

[59]
HU M M, ZHENG W Y, CHENG M H, et al. Sesamol reverses myofiber-type conversion in obese states via activating the SIRT1/AMPK signal pathway[J]. Journal of Agricultural and Food Chemistry, 2022, 70(7):2253-2264.

[60]
XUE Y H, HUANG Z Q, CHEN X L, et al. Naringin induces skeletal muscle fiber type transformation via AMPK/PGC-1α signaling pathway in mice and C2C12 myotubes[J]. Nutrition Research, 2021, 92:99-108.

[61]
LIU X Y, WANG Y L, HOU L M, et al. Fibroblast growth factor 21 (FGF21) promotes formation of aerobic myofibers via the FGF21-SIRT1-AMPK-PGC1α pathway[J]. Journal of Cellular Physiology, 2017, 232(7):1893-1906.

Outlines

/