RESEARCH PAPER

Study on Alleviating Effects of Acanthopanax senticosus Polysaccharides on Lipopolysaccharide-Induced Mechanical Barrier Injury in Porcine Intestinal Epithelial Cells

  • LI Shuang , 1, 2 ,
  • TAN Xue 1 ,
  • YANG Fan 1 ,
  • NIU Haijiao 1 ,
  • HAN Jie , 1, *
Expand
  • 1 College of Animal Science and Veterinary Medicine, Shenyang Agricultural University, Shenyang 110866, China
  • 2 Animal Disease Prevention and Control Center of Kuandian Manchu Autonomous County, Dandong 118200, China
*associate professor, E-mail:

Received date: 2025-12-26

  Online published: 2026-08-13

Abstract

This experiment aimed to investigate mitigative effects of Acanthopanax senticosus polysaccharides (ASPS) on lipopolysaccharide (LPS)-induced mechanical barrier injury in porcine intestinal epithelial cells (IPEC-J2 cells). Firstly, flow cytometry was used to detect cell apoptotic rate for screening the appropriate concentration of ASPS, and the trans-epithelial electrical resistance (TEER) was measured by Transwell assay to determine the optimal LPS treatment duration. Then, IPEC-J2 cells were divided into four groups (3 replicates per group). Control group were cultured with RPMI medium for 48 h continuously; LPS group were first cultured with RPMI medium for 36 h and then stimulated with 250 μg/mL LPS for 12 h; ASPS+LPS group and ASPS group were pretreated with 1 000 μg/mL ASPS for 36 h, and then stimulated with 250 μg/mL LPS for 12 h and cultured with RPMI medium for 12 h, respectively. After above treatment, cells were collected for observation of cell morphology, determination of lactate dehydrogenase (LDH) activity, and detection of the relative expression levels of tight junction proteins, apoptosis- and autophagy-related proteins by Western blot. Finally, the control group, LPS group, LPS+3-methyladenine (3-MA) group, ASPS+LPS group and ASPS+LPS+3-MA group (three replicates per group) were set up to observe the changes in autophagy signaling pathways. After treatment, cells were collected to detect the relative expression levels of tight junction proteins and autophagy-related proteins. The results showed as follows: 1) pretreatment with 600, 800 and 1 000 μg/mL ASPS significantly decreased the cell apoptotic rate (P<0.05), with 1 000 μg/mL ASPS showing the best effect. 2) At LPS treatment durations of 6, 12 or 18 h, LPS significantly reduced TEER (P<0.05); after pretreatment with 1 000 μg/mL ASPS, the TEER was significantly increased at all LPS treatment durations (P<0.05), and the protective effect of ASPS was the best at the LPS treatment duration of 12 h. 3) Compared with the control group, LPS treatment resulted in increased cell sparseness, vacuolization and necrosis, and LDH activity was significantly increased (P<0.05); the relative expression levels of Occludin, zonula occludens-1 (ZO-1) and B-cell lymphoma-2 (Bcl-2) were significantly down-regulated (P<0.05), while relative expression levels of Caspase-3, B-cell lymphoma-2-associated X protein (Bax) and microtubule-associated protein light chain 3 (LC3)-Ⅱ as well as the LC3-Ⅱ/LC3-Ⅰ ratio were significantly up-regulated (P<0.05). Pretreatment with 1 000 μg/mL ASPS for 36 h reversed the above changes. 4) Compared with the control group, relative expression levels of phosphorylated phosphatidylinositol 3-kinase (p-PI3K), phosphorylated protein kinase B (p-AKT) and phosphorylated mammalian target of rapamycin (p-mTOR) were significantly increased after LPS induction (P<0.05), and pretreatment with 1 000 μg/mL ASPS for 36 h reversed the above changes, while co-incubation with 3-MA further decreased the above indicators. In conclusion, ASPS may regulate autophagy and apoptosis in IPEC-J2 cells through inhibiting the phosphatidylinositol 3-kinase (PI3K)/protein kinase B (AKT)/mammalian target of rapamycin (mTOR) signaling pathway, thereby alleviating LPS-induced mechanical barrier injury in IPEC-J2 cells.

Cite this article

LI Shuang , TAN Xue , YANG Fan , NIU Haijiao , HAN Jie . Study on Alleviating Effects of Acanthopanax senticosus Polysaccharides on Lipopolysaccharide-Induced Mechanical Barrier Injury in Porcine Intestinal Epithelial Cells[J]. Chinese Journal of Animal Nutrition, 2026 , 38(8) : 6165 -6175 . DOI: 10.12418/CJAN2026.493

肠道是动物机体营养物质消化吸收的场所,也是机体最大的免疫器官。肠道黏膜屏障被视为多器官功能障碍综合征的核心器官[1]。肠道机械屏障功能障碍导致的上皮通透性改变,会促使肠道内寄生微生物及其毒素向肠腔外组织移位,使机体受到内源性微生物及其毒素的侵害[2]。现有研究认为,该过程与微生物感染诱发的炎症性疾病,包括全身炎症反应综合征、脓毒症、器官功能障碍等存在紧密关联[3-4]
自噬作为一种常见的细胞代谢过程,通过降解和回收蛋白质来维持细胞内稳态[5]。它在应对多种应激源(如缺氧、感染、内质网应激、免疫反应和细胞死亡)中起关键作用[6-7]。自噬是一把双刃剑,在正常生理机制中通常支持细胞代谢[8],但过度自噬通常会导致细胞死亡[9]。越来越多的证据表明,自噬在肠道黏膜屏障稳态中起重要作用。大肠杆菌脂多糖(lipopolysaccharides,LPS)可以使机体的免疫系统和炎症系统过度激活,从而升高机体的自噬水平[10-11]。磷脂酰肌醇3激酶(PI3K)/蛋白激酶B(AKT)作为肠道损伤中的重要自噬信号通路的分子靶点,其激活可调节自噬相关蛋白活性,导致自噬标志蛋白微管相关蛋白轻链3(LC3)-Ⅱ表达;在极端条件下,过度活跃的自噬可能导致细胞器大量降解,细胞功能丧失[12],该过程通过调控半胱天冬蛋白酶(Caspase)活性或破坏由B淋巴细胞瘤-2(Bcl-2)家族蛋白介导的线粒体稳定性[13]而诱导凋亡的发生。
刺五加(Acanthopanax senticosus,AS)为五加科五加属植物,适宜生长在森林或灌丛区域,国内多见于东北地区较为常见,同时在俄罗斯、朝鲜等国家也有分布[14]。刺五加的活性多糖成分刺五加多糖(Acanathopanax senticosus polysaccharides,ASPS)已被证实具有多种药理学和生理学作用,包括免疫调节、抗炎及抗氧化作用[15]。前期研究表明,ASPS可显著改善肠道上皮形态与功能障碍[16-17]。刺五加提取物在肝脏[18]、肾脏[19]及神经系统[20]等组织的病理过程中已被证实具有保护功能。因此,本试验通过采用标准的猪小肠上皮细胞(IPEC-J2细胞)构建LPS诱导的肠上皮机械屏障损伤模型,体外研究ASPS对LPS诱导的IPEC-J2机械屏障完整性、凋亡以及自噬相关的PI3K/AKT/哺乳动物雷帕霉素靶蛋白(mTOR)信号蛋白的影响,并进一步采用PI3K自噬抑制剂3-甲基腺嘌呤(3-MA)探讨ASPS调节IPEC-J2细胞机械屏障损伤的作用机制,为ASPS作为饲料添加剂在预防动物肠道屏障损伤中的应用奠定理论基础。

1 材料与方法

1.1 试验材料

IPEC-J2细胞购自湖南丰晖生物科技有限公司;ASPS通过水提醇沉法从刺五加的根部提取得到;LPS购自美国Sigma-Aldrich公司;改良的RPMI培养基购自以色列BI公司;3-MA购自美国GLPBIO公司。兔多克隆抗体如B淋巴细胞瘤-2相关X蛋白(Bax)、半胱天冬蛋白酶-3(Caspase-3)、LC3、磷酸化PI3K(p-PI3K)、磷酸化AKT(p-AKT)、磷酸化mTOR(p-mTOR)、Bcl-2、mTOR和封闭蛋白-1(Claudin-1)均购自武汉三鹰生物技术有限公司;兔多克隆抗体闭合蛋白(Occludin)和小鼠单克隆抗体闭锁小带蛋白-1(ZO-1)分别购自美国Novus Biologicals公司和亚诺法生技股份有限公司。

1.2 主要试剂配制

采用电子秤分别称量600、800、1 000 μg ASPS粉末,加入1 mL RPMI培养基稀释后,0.22 μm滤器过滤除菌配制成600、800、1 000 μg/mL ASPS工作液供后续使用。LPS在改良的RPMI培养基中稀释,制备1 mg/mL的储备液,稀释配制成250 μg/mL的工作液供后续使用。3-MA在改良RPMI培养基中稀释,制备成5 mmol/L工作液供后续使用。

1.3 细胞培养

IPEC-J2细胞复苏后,用含10%胎牛血清+1%青-链霉素的RPMI培养基,静置于37 ℃、5%二氧化碳细胞培养箱中培养。

1.4 试验方法

1.4.1 ASPS作用浓度筛选和细胞凋亡率(cell apoptotic rate)检测

采用膜联蛋白V(Annexin V)-异硫氰酸荧光素(FITC)/碘化丙啶(PI)凋亡检测试剂盒(南京诺唯赞生物科技股份有限公司),按照说明书处理IPEC-J2细胞。将细胞以2×105个/孔的密度接种于6孔板中,孵育24 h。将IPEC-J2细胞分为对照组(Control组)、LPS组及ASPS+LPS组,每组3个重复。Control组细胞以RPMI培养基连续培养48 h;LPS组细胞先以RPMI培养基培养36 h,再以250 μg/mL LPS刺激12 h;ASPS+LPS组细胞分别以600、800、1 000 μg/mL ASPS处理36 h,再以250 μg/mL LPS刺激12 h。收集各组细胞,分别加入5 μL Annexin V-FITC和PI染色液,室温避光孵育10 min。1 h内通过流式细胞仪(BD,美国)检测,得到各组的流式细胞凋亡散点图,并计算细胞凋亡率(%)。

1.4.2 LPS处理时长筛选和跨上皮电阻(TEER)检测

将IPEC-J2细胞以2×10⁵个/孔的密度接种于6孔板中,置于孔径为0.4 μm的4.67 cm2 Transwell小室培养3 d后,使用RE1600上皮电阻仪(北京金工鸿泰科技有限公司)测定TEER。当TEER稳定升高时,选取细胞电阻值达到要求的Transwell小室,分为Control组、LPS组、ASPS+LPS组及ASPS组进行处理,每组3个重复。Control组细胞以RPMI培养基连续培养72 h;LPS组细胞先以RPMI培养基培养48 h,再以250 μg/mL LPS刺激24 h;ASPS+LPS组和ASPS组细胞采用筛选的最适作用浓度的ASPS处理48 h,再分别以250 μg/mL LPS刺激24 h或RPMI培养基培养24 h。在LPS处理24 h时间段内,分别在处理6、12、18和24 h同步测量各组细胞电阻值并记录。测量时每个Transwell小室选择3个不同方向的点并重复测量3次,每次测量需同步设置1个不含细胞的空白孔进行测量,取3次测量的平均值计算TEER,计算公式如下:

TEER(Ω·cm2)=(待测细胞电阻值-空白孔电阻值)×Transwell膜面积。

1.4.3 ASPS对LPS诱导IPEC-J2细胞机械屏障损伤的缓解作用

1.4.3.1 试验分组

将IPEC-J2细胞分为Control组、ASPS组、LPS组及ASPS+LPS组,每组3个重复。Control组细胞以RPMI培养基连续培养48 h;LPS组细胞先以RPMI培养基培养36 h,再以250 μg/mL LPS刺激12 h;ASPS+LPS组和ASPS组细胞采用筛选的最适作用浓度的ASPS处理36 h,再分别以250 μg/mL LPS刺激12 h或RPMI培养基培养12 h。

1.4.3.2 细胞形态观察

采用倒置相差显微镜观察各组IPEC-J2细胞形态。

1.4.3.3 乳酸脱氢酶(LDH)活性检测

先使用1 000 μg/mL ASPS处理,随后用LPS诱导24 h后取细胞上清液样本,按照南京建成生物工程研究所的试剂盒说明书步骤测定LDH活性。

1.4.3.4 蛋白质免疫印迹(Western blot)分析

使用添加了蛋白酶抑制剂混合物的RIPA缓冲液,于冰上裂解细胞,随后离心取上清,加5×loading buffer。根据目的蛋白选择合适的分离胶进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(sodium dodecyl sulfate-polyacrylamide gel electrophoresis,SDS-PAGE)分离,转膜,用5%牛血清白蛋白(BSA)封闭1 h,与相应一抗4 ℃摇床孵育过夜,次日洗膜5次,然后室温摇床孵育二抗1 h,再洗膜5次,最后加入显影液拍照观察,所得蛋白条带通过Image J软件进行灰度值统计分析。所检测目的蛋白包括Occludin、ZO-1、Caspase-3、Bax、Bcl-2、LC3-Ⅰ、LC3-Ⅱ。

1.4.4 PI3K信号通路作用验证

将IPEC-J2细胞分为Control组、LPS组、LPS+3-MA组、ASPS+LPS组及ASPS+LPS+3-MA组,每组3个重复。Control组细胞以RPMI培养基连续培养50 h;LPS组细胞先RPMI培养基培养38 h,再以250 μg/mL LPS刺激12 h;LPS+3-MA组细胞先RPMI培养基培养36 h,再以5 mmol/L 3-MA处理2 h,最后以250 μg/mL LPS刺激12 h;ASPS+LPS组细胞采用筛选的最适作用浓度的ASPS处理38 h,再以250 μg/mL LPS刺激12 h;ASPS+LPS+3-MA组采用筛选的最适作用浓度的ASPS处理36 h,再以5 mmol/L 3-MA处理2 h,最后以250 μg/mL LPS刺激12 h。采用1.4.3.4的Western blot法检测p-AKT、p-PI3K、p-mTOR、Occludin及Claudin-1蛋白相对表达量。

1.5 数据统计与分析

运用Shapiro-Wilk检验数据的正态分布,不符合正态分布的数据采用Kruskal-Wallis H进行非参数检验,符合正态分布的数据则采用单因素方差分析并结合LSD法进行多重比较。使用GraphPad Prism 5软件绘图。试验数据以平均值±标准差(SD)表示,P<0.05表示差异显著。

2 结果与分析

2.1 不同浓度ASPS对LPS诱导的IPEC-J2细胞凋亡的影响
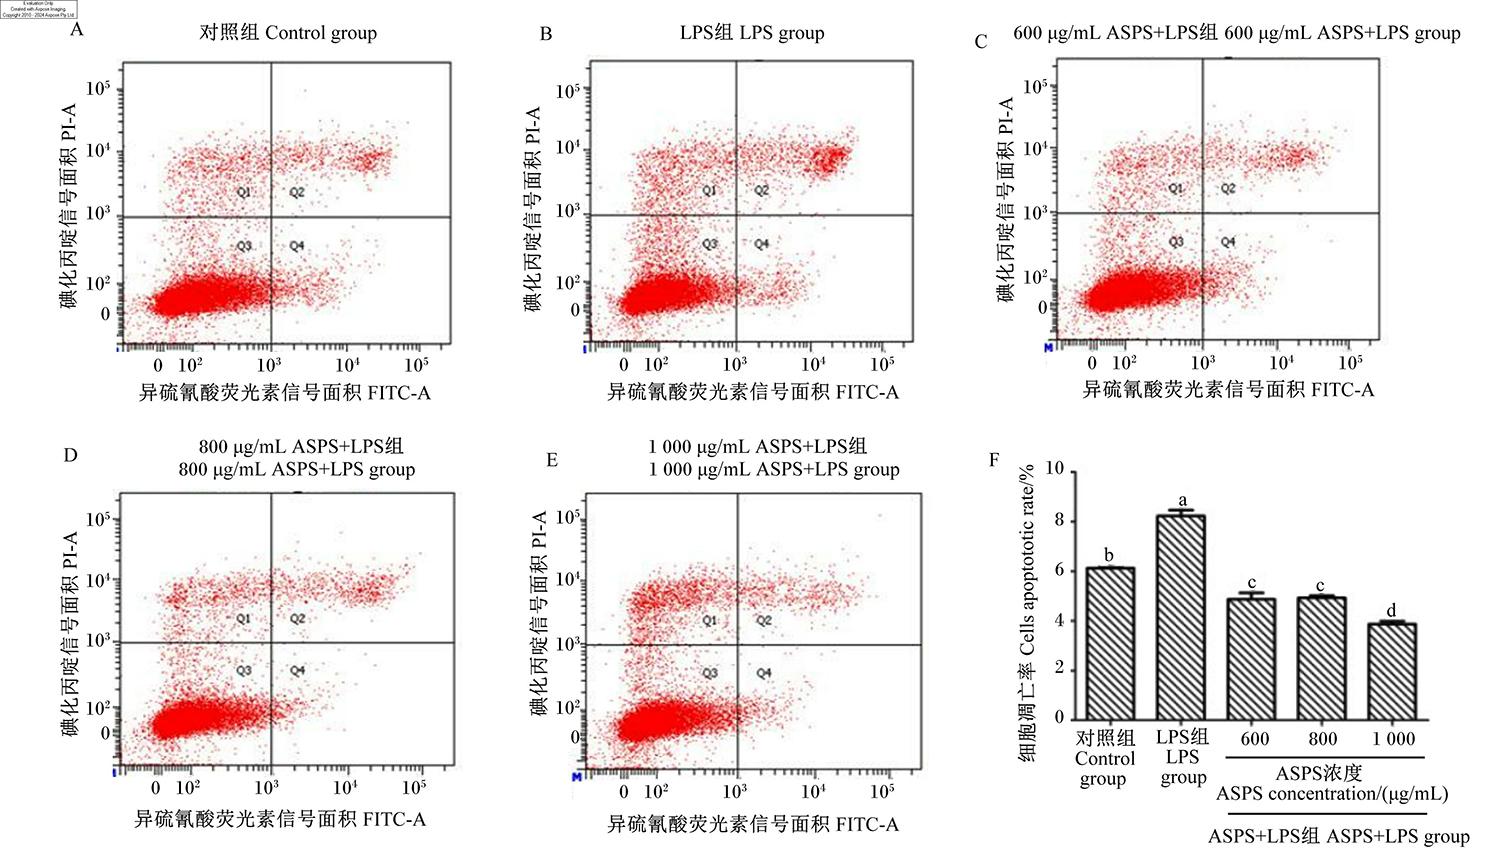
图1可知,与Control组相比,LPS刺激会明显诱发细胞早期和晚期凋亡,显著增加细胞凋亡率(P<0.05);而ASPS+LPS组凋亡细胞均明显减少,其中600、800 μg/mL ASPS预处理后细胞凋亡率显著低于LPS组(P<0.05),1 000 μg/mL ASPS预处理后凋亡细胞率进一步显著降低(P<0.05),说明ASPS预处理能逆转LPS的促凋亡作用,发挥细胞保护效果。因此,后续试验采用1 000 μg/mL的ASPS作用浓度。
图1 不同浓度ASPS对LPS诱导的IPEC-J2细胞凋亡的影响

Q1为机械性坏死细胞,Q2为晚期凋亡细胞,Q3为活细胞,Q4为早期凋亡细胞。Q1 represented mechanically necrotic cells, Q2 represented late-stage apoptotic cells, Q3 represented viable cells, and Q4 represented early-stage apoptotic cells.

数据柱形标注无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effect of different concentrations of ASPS on apoptosis of IPEC-J2 cells induced by LPS

Value columns with no letter or the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.2 ASPS对LPS诱导的IPEC-J2细胞机械屏障完整性的影响

2.2.1 不同LPS处理时长下ASPS对IPEC-J2细胞TEER的影响
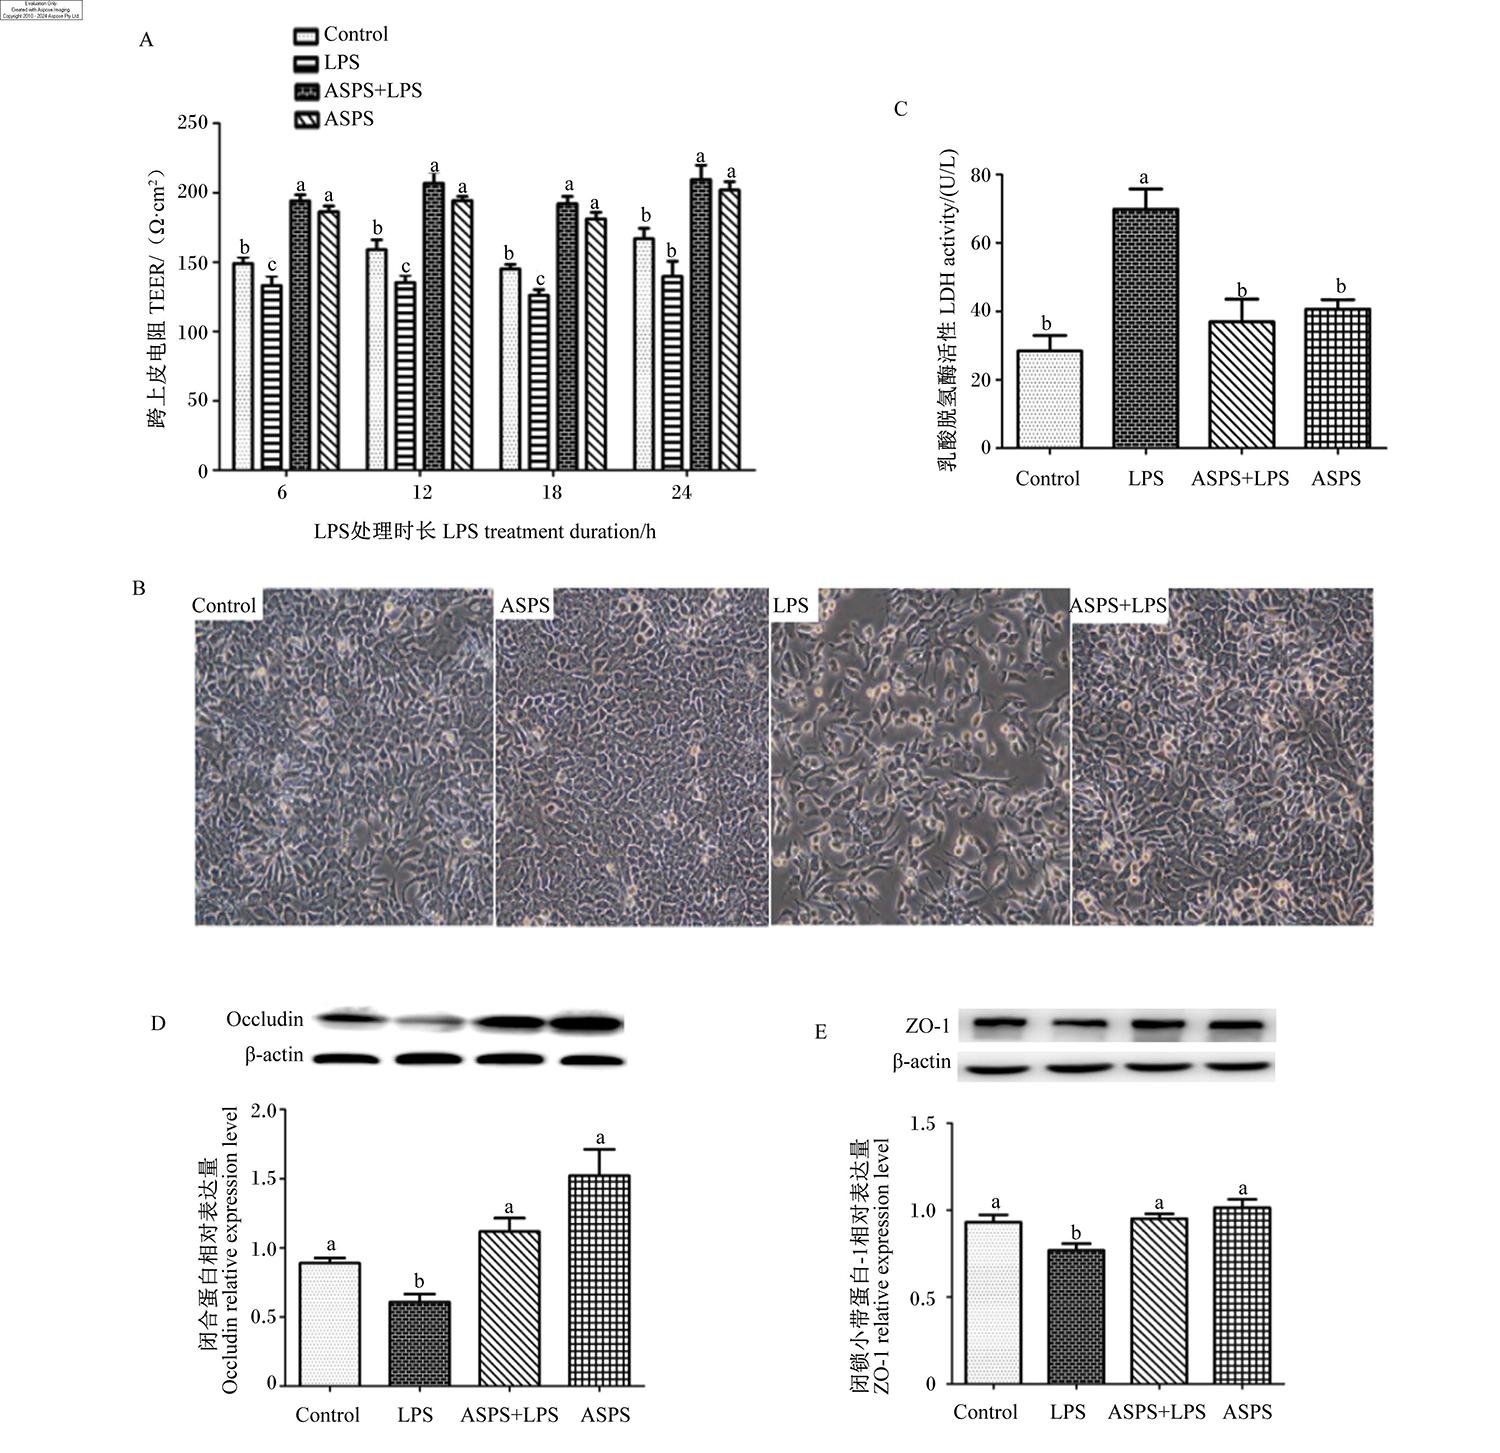
图2-A可知,与Control组相比,LPS组刺激IPEC-J2细胞24 h后TEER无显著差异(P>0.05),LPS处理时长为6、12、18 h时TEER均显著降低(P<0.05);经1 000 μg/mL ASPS预处理后,不同LPS处理时长时ASPS+LPS组TEER均显著高于LPS组(P<0.05),且在LPS处理时长为12 h时ASPS的保护效果最佳,其次是18和24 h,因此后续试验选择12 h作为LPS处理时长。另外,与Control组相比,ASPS组TEER显著提高(P<0.05),说明1 000 μg/mL ASPS不会损伤正常细胞屏障,对IPEC-J2细胞是安全的。
图2 ASPS对LPS诱导的IPEC-J2细胞机械屏障完整性的影响

Occludin:闭合蛋白;β-actin:β-肌动蛋白;ZO-1:闭锁小带蛋白-1 zonula occluden-1。

Control:对照组 Control group;LPS:LPS组 LPS group;ASPS+LPS:ASPS+LPS组 ASPS+LPS group;ASPS:ASPS组 ASPS group。图3同 the same as Fig.3

Fig.2 Effects of ASPS on mechanical barrier integrity in LPS-induced IPEC-J2 cells

2.2.2 ASPS对LPS诱导的IPEC-J2细胞形态、LDH活性和紧密连接蛋白表达的影响

图2-B可知,Control组和ASPS组的IPEC-J2细胞连接紧密且分布均匀,大小和形状比例良好;LPS组细胞出现明显恶化,表现为细胞稀疏、空泡化和坏死增加;ASPS预处理后,ASPS+LPS组细胞形态恢复了正常外观。
图2-C可知,与Control组相比,LPS导致细胞外LDH活性显著升高(P<0.05);与LPS组相比,ASPS+LPS组LDH活性显著降低了47%(P<0.05),ASPS预处理后IPEC-J2细胞机械屏障损伤得到改善。
图2-D图2-E可知,与Control组相比,LPS组IPEC-J2细胞紧密连接蛋白Occludin和ZO-1的相对表达量均显著下调(P<0.05);与LPS组相比,ASPS预处理后,ASPS+LPS组Occludin和ZO-1的相对表达量均显著上调(P<0.05)。

2.3 ASPS对LPS诱导的IPEC-J2细胞凋亡和自噬相关蛋白的影响

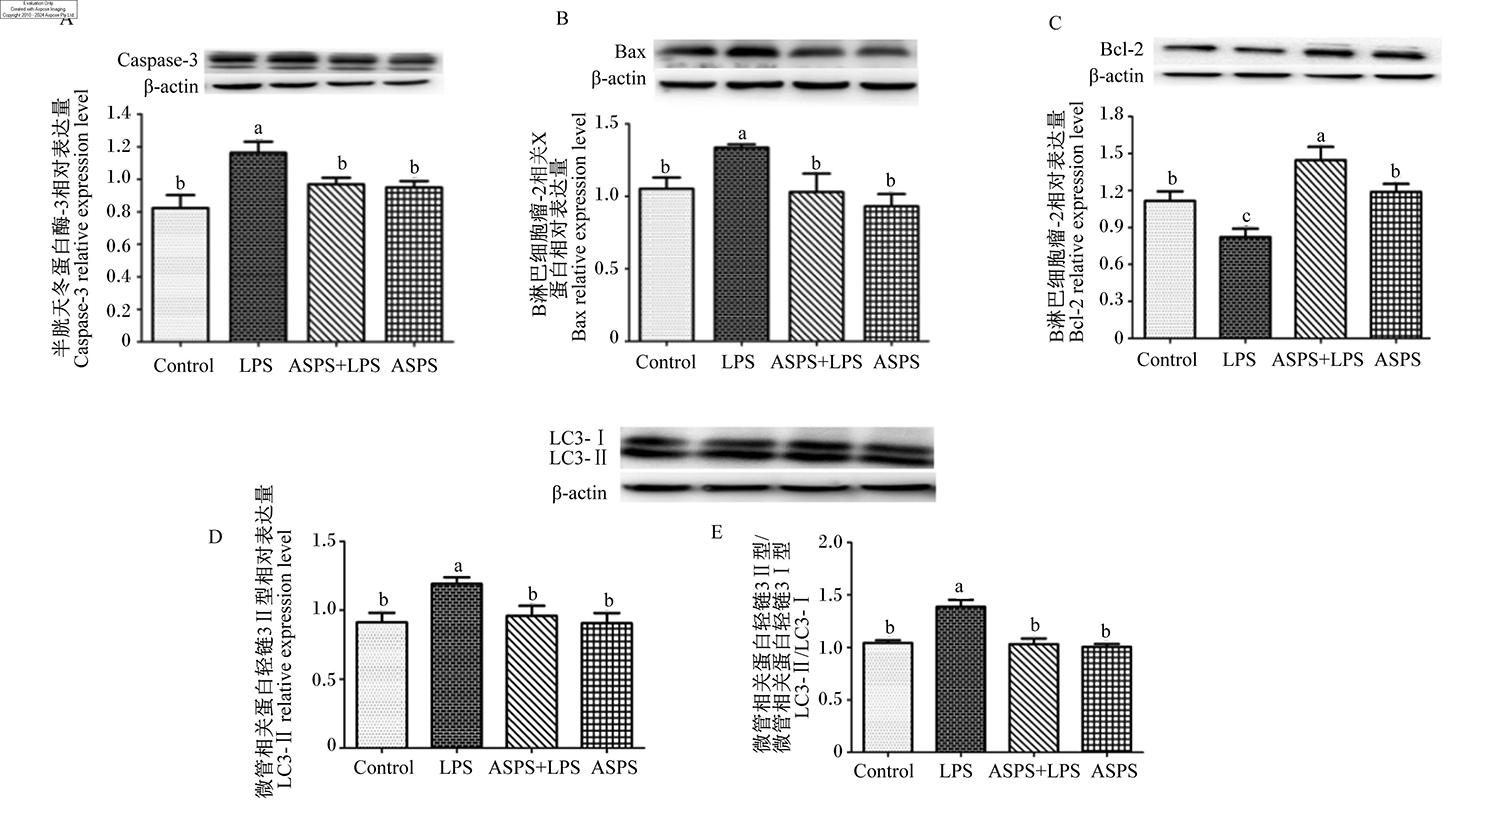
图3-A图3-B可知,与Control组相比,LPS诱导的IPEC-J2细胞Caspase-3和Bax的蛋白相对表达量显著上调(P<0.05);与LPS组相比,ASPS预处理后,ASPS+LPS组这2种蛋白相对表达量均显著下调(P<0.05)。由图3-C可知,与Control组相比,LPS组细胞的Bcl-2相对表达量出现显著下调(P<0.05),ASPS预处理不仅逆转了这一趋势,其相对表达量甚至显著高于Control组(P<0.05)。由图3-D图3-E可知,与Control组相比,LPS诱导显著上调了LC3-Ⅱ相对表达量和LC3-Ⅱ/LC3-Ⅰ比值(P<0.05);与LPS组相比,ASPS+LPS组LC3-Ⅱ相对表达量和LC3-Ⅱ/LC3-Ⅰ比值均显著下调(P<0.05)。
图3 ASPS对LPS诱导的IPEC-J2细胞凋亡和自噬相关蛋白表达的影响

Caspase-3:半胱天冬蛋白酶-3 cysteinyl aspartate-specific proteinase 3;β-actin:β-肌动蛋白;Bax:B淋巴细胞瘤-2相关X蛋白 B-cell lymphoma-2-associated X protein;Bcl-2:B淋巴细胞瘤-2 B-cell lymphoma-2;LC3-Ⅰ:微管相关蛋白轻链3Ⅰ型 microtubule-associated protein light chain 3 type Ⅰ;LC3-Ⅱ:微管相关蛋白轻链3Ⅱ型 microtubule-associated protein light chain 3 type Ⅱ。

Fig.3 Effects of ASPS on expression of apoptosis and autophage-related proteins in LPS-induced IPEC-J2 cells

2.4 ASPS和PI3K自噬抑制剂对LPS诱导的IPEC-J2细胞自噬相关蛋白表达的影响
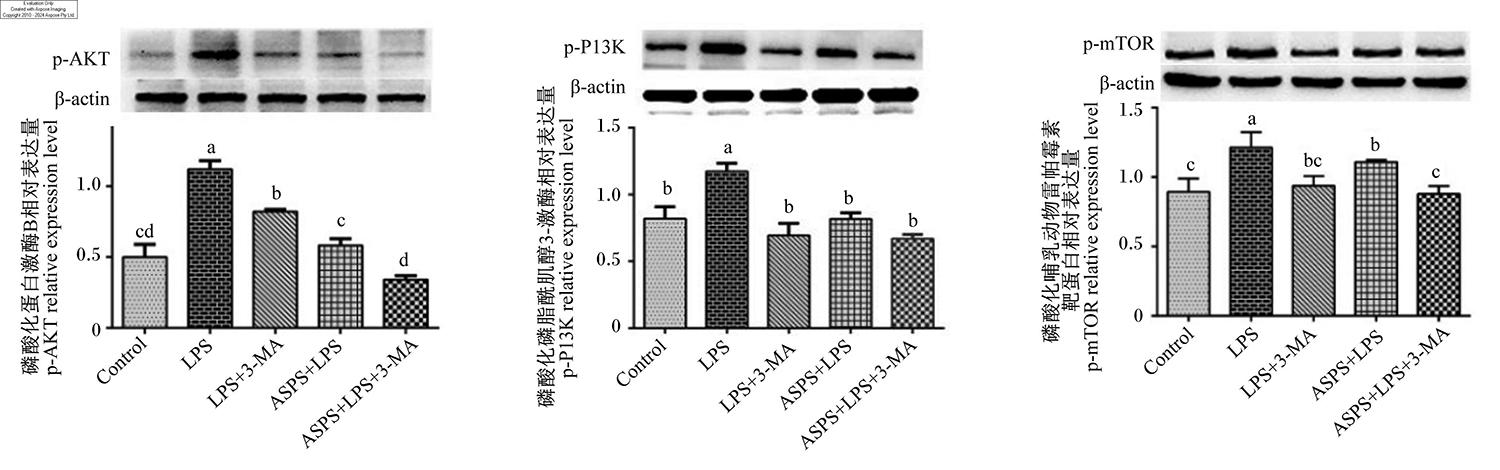
图4可知,与Control组相比,LPS诱导后p-PI3K、p-AKT和p-mTOR蛋白相对表达量显著升高(P<0.05);与LPS组相比,ASPS预处理后,ASPS+LPS组这3种蛋白相对表达量均显著下调(P<0.05);与ASPS+LPS组相比,ASPS+LPS+3-MA组p-AKT和p-mTOR蛋白相对表达量显著降低(P<0.05);p-PI3K蛋白相对表达量数值上有降低,但差异不显著(P>0.05)。
图4 ASPS和PI3K自噬抑制剂对LPS诱导的IPEC-J2细胞自噬相关蛋白表达的影响

p-AKT:磷酸化蛋白激酶B phosphorylated protein kinase B;β-actin:β-肌动蛋白;p-P13K:磷酸化磷脂酰肌醇3-激酶 phosphorylated phosphoinositide 3-kinase;p-mTOR:磷酸化哺乳动物雷帕霉素靶蛋白 phosphorylated mammalian target of rapamycin。

Control:对照组 Control group;LPS:LPS组 LPS group;LPS+3-MA:LPS+3-MA组 LPS+3-MA group;ASPS+LPS:ASPS+LPS组 ASPS+LPS group;ASPS+LPS+3-MA:ASPS+LPS+3-MA组 ASPS+LPS+3-MA group。图5同 the same as Fig.5

Fig.4 Effects of ASPS and PI3K autophagy inhibitors on expression of autophagy-related proteins in LPS-induced IPEC-J2 cells

2.5 ASPS和PI3K自噬抑制剂对LPS诱导的IPEC-J2细胞屏障完整性的影响

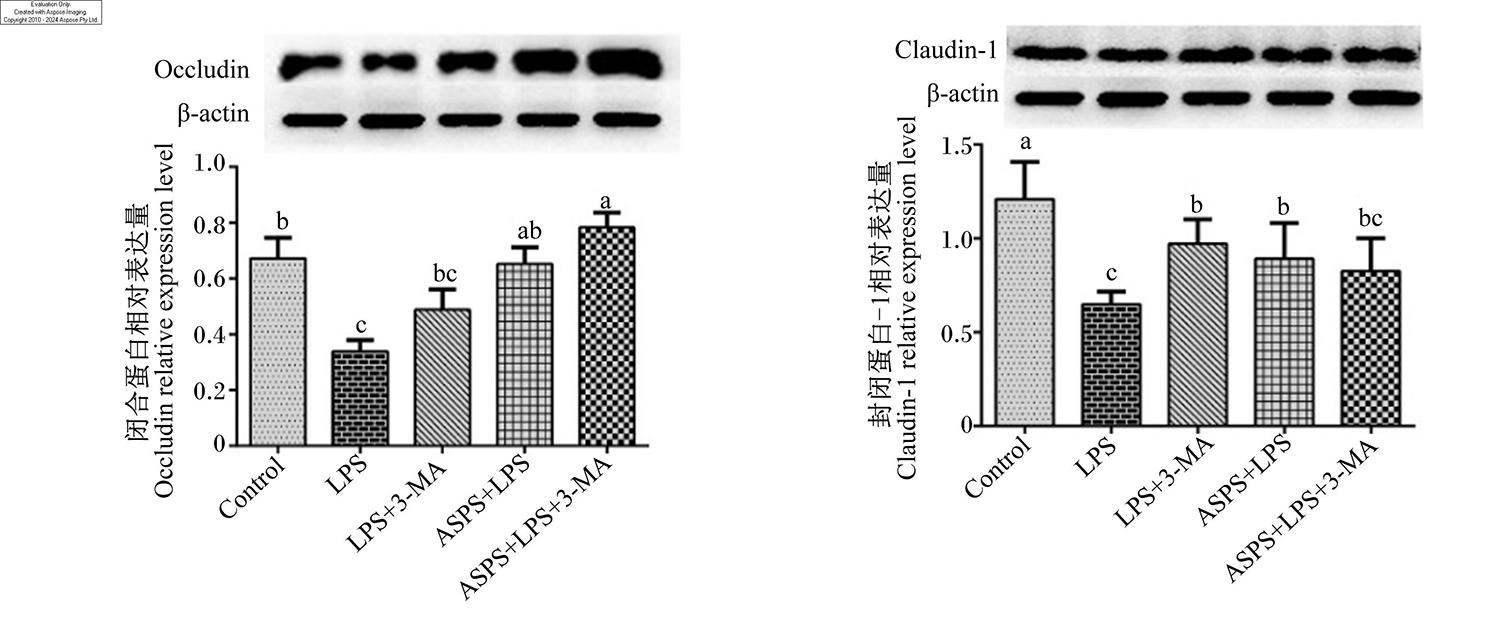
图5可知,与Control组相比,LPS诱导后紧密连接蛋白Occludin和Claudin-1相对表达量显著下降(P<0.05);与LPS组相比,ASPS预处理后这2种蛋白相对表达量均显著提高(P<0.05);与LPS组相比,ASPS+LPS+3-MA组紧密连接蛋白Occludin和LPS+3-MA组Claudin-1相对表达量显著提高(P<0.05);与ASPS+LPS组相比,ASPS+LPS+3-MA组紧密连接蛋白Occludin相对表达量数值上有提高,Claudin-1相对表达量数值上有下降,但均差异不显著(P>0.05)。
图5 ASPS和PI3K自噬抑制剂对LPS诱导的IPEC-J2细胞紧密连接蛋白表达的影响

Occludin:闭合蛋白;β-actin:β-肌动蛋白;Claudin-1:封闭蛋白-1。

Fig.5 Effects of ASPS and PI3K autophagy inhibitors on expression of tight junction proteins in LPS-induced IPEC-J2 cells

3 讨论

刺五加提取物作为传统草药,数千年来在我国被广泛用于调节免疫功能低下、缺氧、疲劳和食欲不振,且无副作用[21]。从刺五加中分离出的多糖ASPS是其主要活性成分,但其调节肠道屏障功能的机制尚未完全阐明。LPS是由革兰氏阴性菌产生的细菌表面糖脂,该物质可诱发全身性炎症反应并破坏肠道上皮屏障完整性[22]。本试验采用大肠杆菌LPS诱导的免疫应激模型,以确定ASPS预处理是否能通过调节PI3K/AKT/mTOR信号通路及伴随的肠道屏障功能改善来减轻LPS诱导的细胞异常自噬。
研究发现,TEER是反映多种细胞系中肠道屏障完整性的指标[23];而胞质酶LDH仅在细胞膜受损后释放[24],其活性可以反映细胞膜完整性和细胞损伤程度;跨膜蛋白Occludin、Claudin-1与胞质支架蛋白ZO-1等共同组成紧密连接复合体,封闭相邻肠道上皮细胞间的细胞旁间隙,主导上皮屏障通透性功能[25]。本试验结果显示,LPS刺激后IPEC-J2细胞TEER显著降低、培养液LDH活性显著升高,紧密连接蛋白Occludin和ZO-1表达下调,上述指标变化证实本试验成功构建了LPS诱导的肠上皮机械屏障损伤模型[26],同时提示LPS可导致紧密连接结构破坏、上皮细胞旁通透性增加,并造成细胞膜完整性受损。本试验中,在LPS刺激前对IPEC-J2细胞进行ASPS预处理,可显著降低LDH活性并恢复紧密连接结构,改善肠道屏障通透性,从而维持机械屏障完整性。
为进一步探究ASPS在LPS处理24 h后对IPEC-J2细胞自噬的影响,首先观察其与自噬交叉调控导致的细胞凋亡发展。研究发现,ASPS主要通过下调LPS诱导的IPEC-J2细胞早期凋亡来缓解细胞凋亡发展。本试验结果发现,LPS刺激会明显诱发细胞早期和晚期凋亡,而600、800 μg/mL ASPS预处理后细胞凋亡率显著低于LPS组,1 000 μg/mL ASPS预处理后凋亡细胞率进一步显著降低,说明ASPS预处理能逆转LPS的促凋亡作用,发挥细胞保护效果。因此,后续试验采用1 000 μg/mL的ASPS作用浓度。凋亡信号级联反应首先由多种成员启动,并由活化的Caspases执行,由Bcl-2和Bax组成的Bcl-2超家族触发内源性凋亡途径[27];随后,上游级联反应引发的裂解Caspases效应器如Caspase-3启动细胞凋亡降解[27]。本试验结果显示,与LPS组相比,ASPS预处理后Caspase-3和Bax蛋白表达均显著下调,Bcl-2蛋白表达显著上调,表明ASPS通过同时调控抗凋亡和促凋亡相关蛋白表达来实现缓解细胞凋亡的作用。
一般而言,自噬可以通过加速细胞代谢周期和帮助细胞适应环境来促进细胞存活。当自噬过度发生时,可能会导致Ⅱ型细胞死亡[28]。在自噬的调控机制中,PI3K/Akt/mTOR信号通路是介导自噬稳态的核心调节轴,其中mTOR激酶作为一种营养和能量传感器,可以调节自噬的激活[29]。PI3K/Akt/mTOR信号通路持续活化可抑制自噬,从而减少LC3-Ⅰ向LC3-Ⅱ的转化;该通路在自噬调控中发挥负调控作用[30-31]。LC3-Ⅱ/LC3-Ⅰ比值是评估自噬活性的经典指标,LPS刺激显著上调LC3-Ⅱ/LC3-Ⅰ比值,提示自噬信号通路被过度激活。而自噬激活过度常伴随细胞凋亡增加,本试验进一步检测凋亡相关指标,以验证自噬在该保护效应中的关键作用。本试验结果显示,LPS诱导12 h的IPEC-J2细胞自噬相关蛋白LC3-Ⅱ的表达显著上调,这表明LPS诱导的IPEC-J2细胞自噬增强。同时,自噬相关蛋白p-PI3K、p-AKT和p-mTOR在ASPS预处理后均被显著下调。ASPS通过下调PI3K/AKT/mTOR信号通路实现了对过度自噬的调节[32]。研究发现,多种自噬相关蛋白如Bcl-2和mTOR都参与了自噬与凋亡之间的复杂相互作用[33]。本试验结果表明,ASPS处理能够有效下调自噬水平,从而减轻细胞凋亡及机械屏障损伤。综上所述,ASPS通过PI3K/AKT/mTOR信号通路抑制自噬过度激活,预防LPS诱导的IPEC-J2自噬和凋亡,保护肠上皮细胞机械屏障完整性。

4 结论

综上所述,ASPS可能通过抑制PI3K/AKT/mTOR信号通路,缓解LPS诱导的IPEC-J2细胞机械屏障损伤,同时减少LDH释放、上调紧密连接蛋白表达、提高TEER并抑制细胞凋亡。
[1]
KAMENSHCHIKOV N O, CHURILINA E A, KOREPANOV V A, et al. Effect of inhaled nitric oxide on intestinal integrity in cardiopulmonary bypass and circulatory arrest simulation:an experimental study[J]. Indian Journal of Anaesthesia, 2024, 68(7):623-630.

[2]
党丹岐, 孔晓慧, 丁迪, 等. 肠道菌群及其代谢物对宿主肠道屏障功能的调控研究进展[J]. 中国畜牧杂志, 2025, 61(11):50-56.

DANG D Q, KONG X H, DING D, et al. Research progress on the regulation of host intestinal barrier function by gut microbiota and its metabolites[J]. Chinese Journal of Animal Science, 2025, 61(11):50-56. (in Chinese)

[3]
EFREMOVA I, MASLENNIKOV R, ALIEVA A, et al. Small intestinal bacterial overgrowth is associated with poor prognosis in cirrhosis[J]. Microorganisms, 2023, 11(4):1017.

[4]
廉永琪, 朱淑芬. 脓毒症相关肠道微生态作用机制研究进展[J]. 陕西医学杂志, 2024, 53(12):1721-1725.

LIAN Y Q, ZHU S F. Advances in mechanism of action of sepsis-associated intestinal microecology[J]. Shaanxi Medical Journal, 2024, 53(12):1721-1725. (in Chinese)

[5]
闫芳芳, 李淑荣, 赵倩倩, 等. 基于“气血理论”探讨细胞自噬与复发性流产的关系[J]. 陕西中医, 2025, 46(12):1663-1668.

YAN F F, LI S R, ZHAO Q Q, et al. To investigate the relationship between autophagy and recurrent spontaneous abortion based on the theory of Qi and blood[J]. Shaanxi Journal of Traditional Chinese Medicine, 2025, 46(12):1663-1668. (in Chinese)

[6]
WU Y, LI L X, NING Z J, et al. Autophagy-modulating biomaterials:multifunctional weapons to promote tissue regeneration[J]. Cell Communication and Signaling, 2024, 22(1):124.

[7]
高宗跃, 席作武, 秦合伟, 等. 中药活性成分诱导细胞自噬抗结直肠癌的研究进展[J]. 世界中医药, 2025, 20(15):2752-2759.

GAO Z Y, XI Z W, QIN H W, et al. Induction of autophagy by active ingredients of Chinese medicine against colorectal cancer:a review[J]. World Chinese Medicine, 2025, 20(15):2752-2759. (in Chinese)

[8]
BISWAS U, ROY R, GHOSH S, et al. The interplay between autophagy and apoptosis:its implication in lung cancer and therapeutics[J]. Cancer Letters, 2024, 585:216662.

[9]
FULLER A D, BORDNER T H, STAUB A J, et al. Autophagy reprogramming in cancer[J]. Journal of Cellular Physiology, 2025, 240(11):e70107.

[10]
XIE W, XUE Y, SONG X K, et al. Forkhead box protein A 2 alleviates Toll-like receptor 4-mediated inflammation,endoplasmic reticulum stress,autophagy,and apoptosis induced by lipopolysaccharide in bovine hepatocytes[J]. Journal of Dairy Science, 2023, 106(3):2089-2112.

[11]
ROMANO K P, HUNG D T. Targeting LPS biosynthesis and transport in Gram-negative bacteria in the era of multi-drug resistance[J]. Biochimica et Biophysica Acta:Molecular Cell Research, 2023, 1870(3):119407.

[12]
岳美杉. 基于PI3K-Akt/NF-κB通路探究原阿片碱抗肠道炎症的作用机制[D]. 博士学位论文. 晋中: 山西农业大学, 2024.

YUE M S. The mechanism of protopine against intestinal inflammation based on the PI3K-Akt/NF-κB pathway[D]. Ph.D.Thesis. Jinzhong: Shanxi Agricultural University, 2024. (in Chinese)

[13]
肖叶懿. AFF1通过PI3K/AKT信号通路缓解DON诱导的猪肠道细胞损伤的分子机制研究[D]. 博士学位论文. 扬州: 扬州大学, 2025.

XIAO Y Y. Molecular mechanism of AFF1 in alleviating deoxynivalenol-induced pig intestinal cell injury via PI3K/AKT signaling pathway[D]. Ph.D.Thesis. Yangzhou: Yangzhou University, 2025. (in Chinese)

[14]
刘伟, 刘玉双, 洪瑞, 等. 刺五加果多糖的微波辅助提取工艺优化及抗氧化活性分析[J]. 饲料工业, 2026, 47(1):146-152.

LIU W, LIU Y S, HONG R, et al. Optimization of microwave-assisted extraction process and antioxidant activity of polysaccharide from fruit of Acanthopanax senticosus[J]. Feed Industry, 2026, 47(1):146-152. (in Chinese)

[15]
苏适, 董立强, 迟彩霞, 等. 刺五加的营养成分、药理作用及其在畜牧生产中的应用研究进展[J]. 饲料研究, 2025, 48(19):174-177.

SU S, DONG L Q, CHI C X, et al. Research progress on nutritional constituents,pharmacological effects,and application in livestock production of Acanthopanax senticosus[J]. Feed Research, 2025, 48(19):174-177. (in Chinese)

[16]
LIU A, ZHANG M, WU Y L, et al. ASPS exhibits anti-rheumatic effects by reprogramming gut microbiota and increasing serum γ-glutamylcysteine level[J]. Advanced Science, 2023, 10(3):e2205645.

[17]
FAN C Y, HAN J, LIU X J, et al. Modulation of hypoxia-inducible factor-1 α/cyclo-oxygenase-2 pathway associated with attenuation of intestinal mucosa inflammatory damage by Acanthopanax senticosus polysaccharides in lipopolysaccharide-challenged piglets[J]. British Journal of Nutrition, 2019, 122(6):666-675.

[18]
ZHOU S X, WEN X, ZHAO Y, et al. Structural elucidation of a Acanthopanax senticosus polysaccharide CQ-1 and its hepatoprotective activity via gut health regulation and antioxidative defense[J]. International Journal of Biological Macromolecules, 2024, 281(Pt 1):136343.

[19]
HAN L, TANG Z B, MA X Y, et al. Integrative transcriptomic and metabolomic analysis reveals that Acanthopanax senticosus fruit ameliorates cisplatin-induced acute kidney injury by suppressing the NF-κB/PI3K-AKT pathway via UGT1A1 regulation[J]. International Journal of Molecular Sciences, 2025, 26(22):11131.

[20]
LU Y, GAO X, NAN Y, et al. Acanthopanax senticosus harms improves Parkinson’s disease by regulating gut microbial structure and metabolic disorders[J]. Heliyon, 2023, 9(7):e18045.

[21]
KOS G, CZARNEK K, SADOK I, et al. Eleutherococcus senticosus (Acanthopanax senticosus):an important adaptogenic plant[J]. Molecules, 2025, 30(12):2512.

[22]
CANDELLI M, FRANZA L, PIGNATARO G, et al. Interaction between lipopolysaccharide and gut microbiota in inflammatory bowel diseases[J]. International Journal of Molecular Sciences, 2021, 22(12):6242.

[23]
LI H J, HAN R, YONG F, et al. The protective effect of eleutheroside E against the mechanical barrier dysfunction triggered by lipopolysaccharide in IPEC-J2 cells[J]. Research in Veterinary Science, 2023, 154:1-7.

[24]
AWAD W A, ASCHENBACH J R, ZENTEK J. Cytotoxicity and metabolic stress induced by deoxynivalenol in the porcine intestinal IPEC-J2 cell line[J]. Journal of Animal Physiology and Animal Nutrition, 2012, 96(4):709-716.

[25]
HAN M, P P, TIAN J H, et al. LncRNA NEAT1 protects uremic toxin-induced intestinal epithelial barrier injury by regulating miR-122-5p/occludin axis[J]. PLoS One, 2025, 20(5):e0322989.

[26]
张思琦, 王安琪, 周思彤, 等. 支链脂肪酸在脂多糖诱导下猪小肠上皮细胞炎性反应中缓解作用的研究[J]. 动物营养学报, 2024, 36(9):5935-5948.

ZHANG S Q, WANG A Q, ZHOU S T, et al. Study on alleviating effects of branched-chain fatty acids on lipopolysaccharide-induced inflammatory response in IPEC-J2 cells[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5935-5948. (in Chinese)

[27]
WEI H D, WANG H L, WANG G X, et al. Structures of p53/BCL-2 complex suggest a mechanism for p53 to antagonize BCL-2 activity[J]. Nature Communications, 2023, 14(1):4300.

[28]
徐芷茵, 潘东升, 赵龙山, 等. 自噬在肿瘤免疫中的双重角色及其治疗潜力[J/OL]. 中国药事, 2025:1- 11(2025-12-08)[2025-12-26]. https://link.cnki.net/urlid/11.2858.R.20251207.1206.002.

XU Z Y, PAN D S, ZHAO L S, et al. The dual roles of autophagy in tumor immunity and its therapeutic potential[J/OL]. Chinese Pharmaceutical Affairs, 2025:1- 11(2025-12-08)[2025-12-26]. https://link.cnki.net/urlid/11.2858.R.20251207.1206.002. (in Chinese)

[29]
曾安琪, 全云云, 刘艾雨, 等. 中药黄芩通过调节自噬在疾病管理中的治疗潜力[J/OL]. 中药药理与临床, 2025:1- 22(2025-12-09)[2025-12-26].https://doi.org/10.13412/j.cnki.zyyl.20251208.001.

ZENG A Q, QUAN Y Y, LIU A Y, et al. The traditional Chinese medicine herb Scutellaria baicalensis has therapeutic potential in disease management by regulating autophagy[J/OL]. Pharmacology and Clinics of Chinese Materia Medica, 2025:1- 22(2025-12-09)[2025-12-26].https://doi.org/10.13412/j.cnki.zyyl.20251208.001. (in Chinese)

[30]
MIZUSHIMA N, YOSHIMORI T, LEVINE B. Methods in mammalian autophagy research[J]. Cell, 2010, 140(3):313-326.

[31]
JIN Z Y, LI Y, PITTI R, et al. Cullin3-based polyubiquitination and p62-dependent aggregation of caspase-8 mediate extrinsic apoptosis signaling[J]. Cell, 2009, 137(4):721-735.

[32]
BHUTIA S K, KEGELMAN T P, DAS S K, et al. Astrocyte elevated gene-1 induces protective autophagy[J]. Proceedings of the National Academy of Sciences, 2010, 107(51):22243-22248.

[33]
HUANG S B, OKAMOTO K, YU C R, et al. P62/sequestosome-1 up-regulation promotes ABT-263-induced caspase-8 aggregation/activation on the autophagosome[J]. The Journal of Biological Chemistry, 2013, 288(47):33654-33666.

Outlines

/