REVIEW

Genetic Engineering Modification Strategies of Rumen Functional Bacteria and Their Research Progress in Ruminant Nutrition

  • ZHAO Yixi ,
  • WEN Shuo ,
  • ZHANG Guijie ,
  • MA Yulin , *
Expand
  • School of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
* associate professor, E-mail:

Received date: 2026-03-25

  Online published: 2026-09-12

Abstract

Genetically engineered bacteria refer to engineered microorganisms that have been modified through genetic engineering techniques such as gene introduction, knockout, regulation, or pathway reconstruction, enabling high-level expression of exogenous proteins or molecular compounds. With the deepening of research on ruminant nutrition and health regulation, genetically engineered bacteria have achieved remarkable results in improving animal performance and maintaining host health. This review systematically summarizes the applicability and limitations of different gene-editing technologies in the modification of rumen functional bacteria; comprehensively outlines the application progress of genetically engineered bacteria in reducing methane emissions, improving cellulose utilization, regulating metabolic pathways, and maintaining host health, clearly identifies the key bottlenecks currently existing in this field, and proposes targeted future research directions.

Cite this article

ZHAO Yixi , WEN Shuo , ZHANG Guijie , MA Yulin . Genetic Engineering Modification Strategies of Rumen Functional Bacteria and Their Research Progress in Ruminant Nutrition[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 6410 -6423 . DOI: 10.12418/CJAN2026.513

反刍动物的瘤胃含有多种微生物,包括细菌、古菌、真菌和原虫等[1]。这些微生物能够维持宿主消化系统的稳定,促进营养物质的消化吸收,并调节机体免疫功能,在反刍动物的营养代谢中发挥着至关重要的作用[2]。目前,研究瘤胃微生物的主要方式有显微镜观察[3]、分离培养微生物以及对瘤胃进行手术穿刺和插管等[4]。其中,分离培养微生物是目前研究瘤胃微生物最为常见的方法[5]。然而,由于瘤胃的特殊环境难以在体外模拟试验中完全再现,许多瘤胃微生物仍然无法被分离培养,加之各类技术原理和方法趋同、无突破性进展,该技术的发展长期面临瓶颈。分离培养微生物技术的研究进展如图1所示。
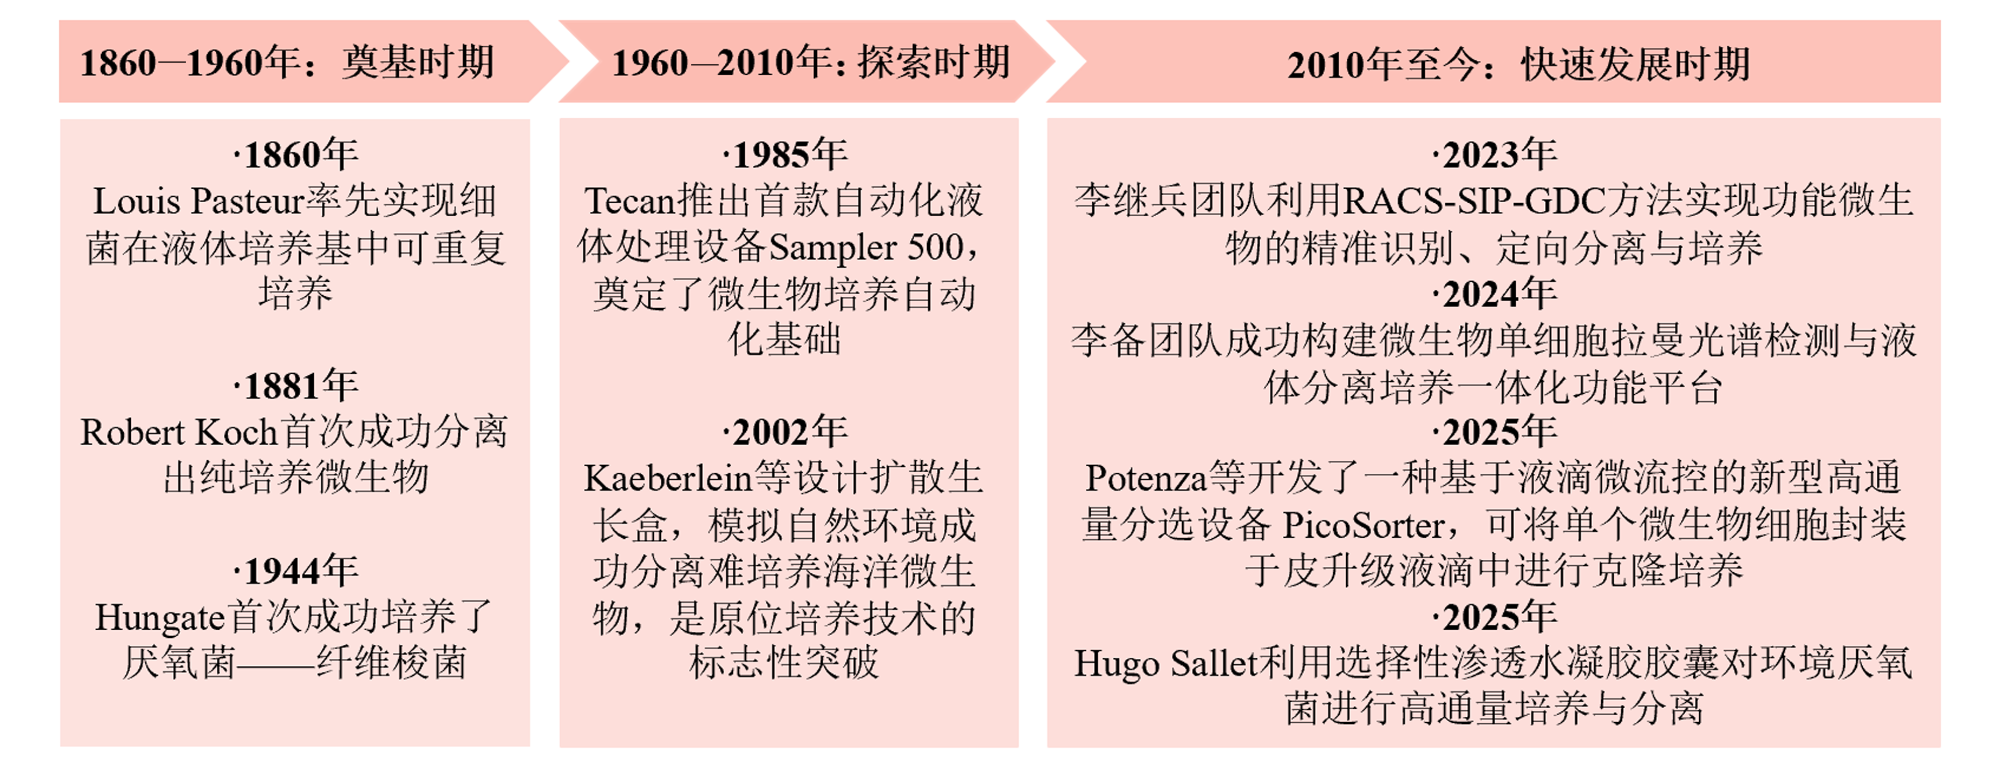
图1 分离培养微生物技术的研究进展

RACS-SIP-GDC:拉曼激活细胞分选-稳定同位素示踪-基因组导向培养 Raman-activated cell sorting-stable-isotope probing-genome-directed cultivation。

Fig.1 Research progress in microbial isolation and culture techniques

传统分离培养方法长期未取得实质性突破,研究一度陷入停滞。而基因编辑技术的发展为瘤胃微生物研究带来了新契机。自1992年首株瘤胃基因工程菌成功构建以来[6],该领域快速发展,凭借高效、稳定等优势,在提升饲料转化率和开发新型添加剂等方面成效显著,展现出广阔的应用前景。本文阐述了基因工程菌的构建方法,总结了其在反刍动物营养中的应用,梳理了现存问题并作出未来展望。基因工程菌的研究进展如图2所示。
图2 基因工程菌的研究进展

CRISPR:成簇规律间隔短回文重复序列 clustered regularly interspaced short palindromic repeats;Cas:成簇规律间隔短回文重复序列相关蛋白 CRISPR-associated protein;CRISPRa:CRISPR激活 CRISPR activation;CRISPRi:CRISPR干扰 CRISPR interference。

Fig.2 Research progress of genetically engineered bacteria

1 基因工程菌的构建方法

1.1 底盘的选择

构建基因工程菌的首要任务是选择合适的细菌底盘进行基因工程改造[7]。底盘是指一种经过改良的基因构建体的载体[8]。经过上百年的探索,众多性能优异、功能多样的底盘微生物已被成功开发[9]
在选择底盘菌株时,需要考虑菌株的生物安全性及其基因操作难度,即其对DNA转化的适应性以及基因组操作工具的可用性[10]。用于瘤胃基因工程菌底盘的细菌主要是已被批准为公认安全(generally recognized as safe,GRAS)的微生物[11],包括大肠杆菌、乳酸杆菌、枯草芽孢杆菌等。除了传统GRAS底盘菌外,反刍动物瘤胃和肠道中的微生物也可以作为底盘菌。苏少锋等[12]对瘤胃真菌的外切葡聚糖酶cbhYW23-1基因和产琥珀酸丝状杆菌的内切葡聚糖酶end-1基因进行了密码子优化,并构建了相应的分泌型表达载体,结果显示2个基因均能够高效稳定表达。吕园梦等[13]从健康奶牛粪便中分离出大肠杆菌,并进一步结合毒力基因鉴定、溶血试验及药敏试验,筛选出1株潜在的安全底盘菌,命名为E28,为开发其他家畜的专用底盘菌提供了参考和依据。

1.2 目的基因的获取

目的基因是指在试验中研究或操纵的特定基因。微生物基因工程利用基因操作工具对其进行剪切、剪接和整合,然后导入底盘细胞。小于10 kb的小基因片段可以通过PCR或者进行DNA合成来获取,经限制性酶切实现定点切割DNA[14]。传统PCR克隆通常受序列长度和GC含量的限制,最大能产生10 kb的片段,在对反应条件进行优化后,其长度通常也限制在35 kb内[15];或者组装多个短片段来形成长基因序列,但这些方法耗时且成本高[16]。为此,科研人员开发出成簇规律间隔短回文重复序列(clustered regularly interspaced short palindromic repeats,CRISPR)及其相关蛋白(CRISPR-associated protein,Cas)9、Red/ET重组技术(Red/ET recombineering)等方法来获得超过50 kb的长基因组序列。CRISPR/Cas9能编辑长达100 kb的DNA片段,由RNA引导的Cas9核酸酶能够定位并切割DNA片段,最终的大基因片段通过Gibson组装法进行组装[17]。Cong等[18]设计了2种不同的CRISPR/Cas系统,并证明了Cas9核酸酶可以在人类和小鼠细胞的内源性基因座上诱导精确切割。

1.3 转化和重组片段

基因工程菌可分为质粒过表达型和基因整合型。其中,过表达型是将目的基因插入质粒载体,再将质粒转移至细菌底盘中;基因整合型是将目的基因直接插入细菌[7]。转化是指通过含外源基因的重组质粒载体将外源基因直接导入细菌[19]。研究表明,采用电穿孔技术将重组载体导入牛胎儿成纤维细胞,通过体细胞核移植技术培育出可表达牛黏蛋白1(MUC1)基因启动子驱动人类β-防御素3的转基因牛,从而降低牛分枝杆菌的感染风险[20]。重组工程是一种利用λ噬菌体重组蛋白质和短DNA同源序列开展的体内同源重组技术[21],能够对靶标DNA进行快速、精准的编辑,且不受限制性酶切位点分布及DNA片段大小的限制[22]。基因重组有3种类型:同源重组、转座重组和位点特异性重组。

1.3.1 Red/ET同源重组

Redαβ同源重组系统源自λ噬菌体,主要由Redα、Redβ和Redγ 3个蛋白构成;RecET同源重组系统源自Rac原噬菌体,主要由RecE和RecT 2个蛋白构成[23]。Zhang等[24]将Redα/Redβ和RecE/RecT重组酶体系合并命名为“Red/ET重组工程”。Li等[25]利用Red/ET同源重组系统,成功构建了依赖T7启动子的羊副流感病毒3型感染性克隆体,其特性与原始毒株具有相似性,为该病毒机制研究及疫苗研发提供了支撑。

1.3.2 转座重组

转座子是一类长度为100~10 000 bp的可移动遗传元件,可将自身基因高效整合至宿主细胞基因组中[26]。转座元件能够移动自身DNA,这可以促进细菌中的水平基因转移,并推动原核生物和真核生物中新分子功能的进化[27]。转座重组主要有非复制和复制2种转座模式。其中,非复制转位仅需转座酶催化,元件从原位点切除并插入新位点[28];复制转位需转座酶和解离酶共同催化,遗传元件从一个DNA位点转座到另一个位点,在新插入位点的两端生成一个短的寡核苷酸重复序列,并在转位过程中进行复制[29]。研究表明,利用转座重组技术对一株乳酸乳球菌菌株进行改造,将外源DNA片段整合到乳酸乳球菌基因组中,使其可特异性检测肠道霍乱弧菌[30]

1.3.3 CRISPR/Cas9基因编辑技术

CRISPR/Cas9是单链向导RNA与Cas9核酸酶协同作用的基因组编辑技术,具有设计简单、成本低,且编辑效率高等优势[31-32],能够在基因组特定位置插入、删除或替换,从而实现对基因功能的精确调控。当外源DNA入侵细菌时,CRISPR/Cas系统能够识别这些外源序列,并将其部分片段作为新的间隔序列整合到CRISPR序列中,从而建立起对特定外源遗传物质的免疫记忆[33],其免疫过程有适应、表达和干扰3个阶段[34]。在适应阶段,识别并将摄入的原间隔区相邻基序(protospacer adjacent motif,PAM)插入优势或相邻区域;在表达阶段,CRISPR序列与PAM一同转录形成前体CRISPR RNA(pre-crRNA)的长转录本,经Cas蛋白加工并形成互补链[35-36]。CRISPR/Cas9技术在反刍动物中主要应用于甲烷减排、抗病育种等方向。在甲烷减排方面,多数古菌的编码是基于CRISPR/Cas适应性免疫系统,所以实现基因组编辑的另一种策略是利用它们的内源性装置[37]。内源性一类Ⅰ型和Ⅲ型CRISPR/Cas系统已成功用于在嗜热古菌冰岛硫化叶菌(Sulfolobus islandicus)的基因组中引入缺失、插入和点突变[38]。迄今为止,在多种甲烷短杆菌菌株中报道了天然CRISPR/Cas系统,包括嗜树木甲烷短杆菌(Methanobrevibacter arboriphilus)ANOR1和口腔甲烷短杆菌(Methanobrevibacter oralis)JMR01[39],这表明借助内源性CRISPR/Cas系统开展瘤胃产甲烷菌的基因调控研究,具有重要的应用价值和发展潜力。在抗病育种方面,Li等[40]利用CRISPR/Cas9在山羊精原干细胞中敲除CD46基因,从而降低牛病毒性腹泻病毒感染率并改善细胞存活增殖。
CRISPR/Cas的衍生技术——CRISPR干扰(CRISPRi)和CRISPR激活(CRISPRa)也为瘤胃非模式菌的精准基因调控提供了新工具。CRISPRi可下调靶基因表达,具备可编程性、可扩展性以及对多种非模式细菌的兼容性[41];CRISPRa则可用于上调目标基因表达[42]。在对瘤胃产甲烷古菌研究中,CRISPRi提供了一种非破坏性的方法,能够精确地降低甲基辅酶M还原酶基因(mcr)等关键基因的表达。在马氏甲烷八叠球菌中,CRISPRi系统已成功整合到基因组中或通过可复制质粒导入[43]。尽管瘤胃非模式菌在质粒递送、启动子适配和dCas蛋白兼容性方面仍面临挑战,但CRISPRi/a正从模式菌向瘤胃原生菌逐步迁移,有望成为瘤胃功能菌精准调控的下一代工具。基因工程菌的构建过程如图3所示。
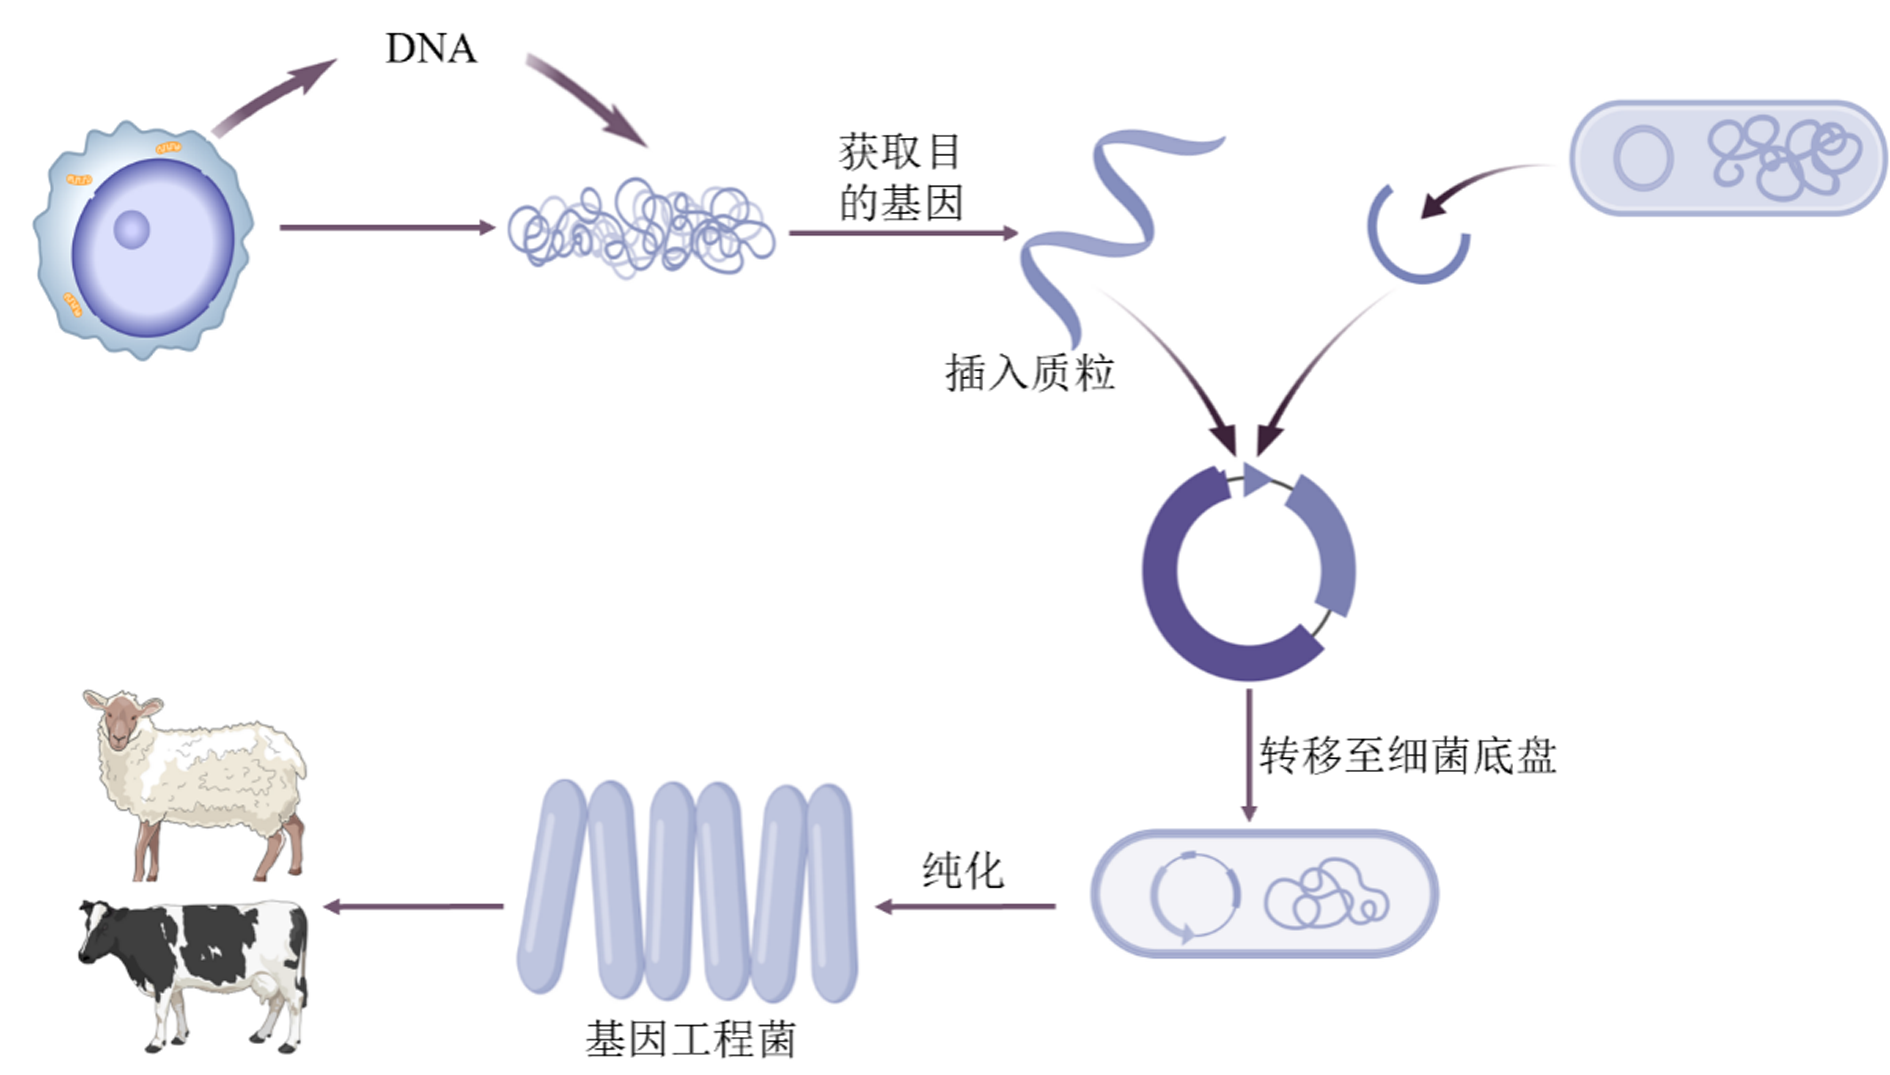
图3 基因工程菌的构建过程

目前仅部分模式底盘菌可完整实现上述流程,多数瘤胃原住菌仍面临转化效率低、同源重组难等问题。

Fig.3 Construction process of genetically engineered bacteria

At present, only some model chassis bacteria can fully achieve the above process, while most rumen native bacteria still face problems such as low transformation efficiency and difficulty in homologous recombination.

2 基因工程菌在反刍动物营养中的应用

2.1 降低甲烷排放

甲烷是造成全球变暖的温室气体之一,其增温潜力是二氧化碳的25倍[44]。畜禽养殖产生的甲烷占全球甲烷排放量的30%,其中88%来源于瘤胃肠道发酵过程[45]。甲烷无法被反刍动物利用,排放到环境中意味着机体能量的损失,损失的能量占总摄入能量的2%~12%。这些能量理论上可用于动物生产,因为它们在饲料转化为瘤胃发酵产物的过程中是守恒的[46]。因此,减少甲烷排放不仅有助于提高动物生产效率,还有利于保护环境。
通过体外对瘤胃古菌进行基因编辑,并随后将其重新引入瘤胃,有望进一步提高动物的生产效率,并减少反刍动物排放的温室气体[47]。目前,用于产甲烷古菌基因编辑技术主要有CRISPR/Cas9和CRISPRi等。Zhao等[43]提出“植物+微生物双靶向”基因编辑策略,同时通过改造饲料和微生物来降低甲烷排放。在饲料方面,可以通过基因编辑提高饲料中的脂质和单宁、皂苷等特定活性物质的含量。例如,利用CRISPR/Cas9编辑脂代谢关键基因(如糖依赖型脂酶基因)提升脂质积累;改造人参皂苷合成通路中的细胞色素P450家族716亚家族A(CYP716A)基因家族,可调控皂苷类型;或调控丹参酚酸合成通路(如编辑迷迭香酸合酶或敲除负调控因子bZIP2),提升酚酸产量[43]。这不仅可以有效抑制瘤胃甲烷的生成,还能够维持动物生产性能。在微生物方面,可以直接利用CRISPR/Cas9技术编辑瘤胃中产甲烷古菌的关键代谢基因——mcr和甲基转移酶系统基因,达到甲烷排放减少的目的[43]。该策略从饲料和微生物2个方面协同减排,思路新颖且具有潜在的高效性,有望在不影响生产性能的前提下实现甲烷控制。然而,CRISPR/Cas9在产甲烷古菌中的编辑效率远低于大肠杆菌等模式菌,这是制约甲烷减排基因工程菌应用的关键瓶颈之一。
此外,Prime编辑是一种新型的基因编辑技术,它能够在不进行双链断裂的情况下对基因组进行精确修改[48]。研究表明,Prime编辑技术已经在植物和小鼠中成功应用[49]。尽管该技术在产甲烷古菌领域仍处于前瞻展望阶段,但未来有望被引入产甲烷古菌中,用于精准编辑mcr等甲烷生成关键酶的编码基因,提高基因编辑的效率和精度,有望减少甲烷排放。

2.2 提高生产性能

反刍动物生产目前面临饲草料供需失衡和饲料效率低等瓶颈,阻碍了高质量畜牧业的发展。通过引入基因工程菌,可以提高纤维素利用率,改善动物饲料消化率,从而提升反刍动物的生产性能。

2.2.1 提高纤维素利用率

饲草中的纤维是反刍动物的主要营养来源,其利用效率直接影响动物的生产性能和健康状况[50]。虽然反刍动物能够消化纤维,但饲粮中的细胞壁多糖很难在瘤胃中被完全降解。大多数牧草的植物细胞壁仅有不到50%被消化利用,这是由于摄入的物质在瘤胃中的停留时间有限[51],导致营养物质利用率低,且以甲烷形式排放,引起大量能量的损失[52]。因此,通过调控瘤胃微生物发酵,促进纤维素降解,可以提高饲料利用率,进而提高动物生产性能[53]
纤维素酶在纤维降解过程中起核心作用,β-葡萄糖苷酶是一种存在于动植物中的纤维素酶[54]。研究表明,牛瘤胃中的微生物群落是纤维素酶的主要来源之一[55],但天然微生物菌株的β-葡萄糖苷酶存在产量低、酶活性低和热稳定性差等缺点[56]。为了能够更高效地降解纤维素,Wang等[57]从牦牛瘤胃中获得的β-葡萄糖苷酶的2个亚基(bglAbglB)在乳酸菌中表达为独立蛋白和融合蛋白,成功构建了更高效的β-葡萄糖苷酶基因工程菌,为β-葡萄糖苷酶的广泛应用奠定了坚实的基础,也为纤维素的高效降解提供了新的思路。然而,乳酸菌作为表达宿主,其在瘤胃复杂环境中的定植能力和长期稳定性仍有待进一步验证。
除β-葡萄糖苷酶外,其他纤维降解相关酶系的基因工程改造也取得进展。Gobius等[58]报道了8种溶纤维丁酸弧菌的成功转化,并在受体中表达帕特里新美鞭菌(Neocallimastix patriciarum)木聚糖酶基因,体外试验表明重组木聚糖酶能够促进植物纤维的降解;Ziemer等[59]将基因工程菌——多形拟杆菌(Bacteroides thetaiotaomicron)BTX菌株经小亚基(small subunit,SSU)rRNA靶向的寡核苷酸探针监测其持久性,结果显示在接种后144 h仍持续存在发酵罐中,且纤维素消化率,特别是半纤维素的消化率提高。上述研究通过基因工程改造瘤胃非模式菌株以增强纤维降解酶系活性,为构建高效纤维降解工程菌提供了重要基础。然而,尽管上述工程菌在体外表现出较高的纤维素酶活性,但在活体瘤胃中的长期定植能力及对纤维消化率的实际提升效果仍有待验证。

2.2.2 调控代谢途径

调控瘤胃微生物的代谢途径同样能改善饲料利用率,提升动物生产性能。反刍兽月形单胞菌(Selenomonas ruminantium)是奶牛瘤胃中的优势菌,占瘤胃总细菌的21%~50%[60]。苑学等[61]以奶牛瘤胃中分离的反刍兽月形单胞菌作为重组基因工程菌的受体菌,应用转座子标签法对受体菌进行转座子诱变,成功构建了反刍兽月形单胞菌乙酸生成的缺陷株。逄晓阳[62]取健康羊瘤胃液,分别加入反刍兽月形单胞菌原始菌、工程菌及乳酸、丙酮酸等底物,动态检测pH及乙酸、丙酸、丁酸、乳酸含量,结果显示2种菌均能利用乳酸生成以丙酸为主的挥发性脂肪酸;且与原始菌相比,工程菌产乙酸能力降低,丙酸产量下降程度虽略低于原始菌,但显著降低了乙酸/丙酸值。由此推测,该菌若作为微生态添加剂直接饲喂围产期奶牛,不仅能够增强围产期奶牛的消化功能,增加采食量,还能够提高瘤胃丙酸的生成量,缓解围产期奶牛的能量负平衡,有助于奶牛生产性能的提升。该策略通过精准调控瘤胃优势菌的代谢通路,展现出较高的应用潜力。不过,乙酸缺陷株在复杂瘤胃微生态中与其他菌群的互作关系,以及其在实际养殖环境中的稳定性和安全性,仍有待进一步研究验证。

2.3 维持机体健康

2.3.1 预防机体代谢疾病

研究表明,将编码氟乙酸脱卤酶的基因转化到基因工程溶纤维丁酸弧菌,并引入到5只试验羊的瘤胃内,结果发现与5只未接种的对照羊相比,5只接种的羊在氟乙酸中毒后表现出明显减少的毒理学症状;同时,对照羊表现出肌肉痉挛、精神萎靡、强迫性进食,而接种的试验羊表现出偶尔的头部抽搐和快速呼吸,但能够保持冷静及正常进食和饮水[63]。这表明该工程菌能够有效保护绵羊免受氟乙酸中毒的危害,为维持机体健康提供了新的防控手段。不过,该工程菌在瘤胃中的长期定植效率及对原生菌群代谢网络的潜在影响尚未阐明,且样本量较小,其在实际养殖环境中的适用性需进一步验证。
埃氏巨球菌(Megasphaera elsdenii)对抑制瘤胃乳酸蓄积发挥关键作用,但当pH降至5.5及以下则完全停止生长,这严重限制了其在瘤胃酸中毒防控中的实际应用效果。Long等[64]成功构建出可在pH 4.8条件下生长的耐酸菌株埃氏巨球菌H6F32,为研发瘤胃酸中毒的新型防控技术提供了依据。然而,该耐酸菌株长期应用是否会引发瘤胃微生态失衡,仍有待更深入的研究加以验证。

2.3.2 构建安全高效的工程益生菌

有效的抗生素替代品对于维持动物健康至关重要。目前,使用益生菌或直接饲用微生物是一种抗生素替代方案,但其效果受限于菌株来源,只有GRAS的菌株才能被用作抗生素替代品。然而,在家畜的肠道中存在独特的生物合成基因簇和其他有益基因。随着基因编辑技术的进步,现已具备将非GRAS批准的微生物菌株中发现的有益基因整合到GRAS批准的菌株中的工具,从而开发出具有有益功能的基因工程微生物。研究表明,从瘤胃微生物中鉴定出生物合成基因盒,并利用底盘非依赖性重组酶辅助基因组工程和随机转座子诱变技术,将其插入到安全批准的菌株中,这种方法可用于设计有益基因,并培育出个性化的益生菌,以改善动物健康[65]。但与此同时,基因整合后的表达稳定性以及对宿主菌群原有代谢网络的影响仍需系统评估。
李锘等[66]从瘤胃微生物cDNA中扩增获得新型葡聚糖酶基因IDSGluc5-31,并构建出相应的大肠杆菌工程菌,纯化后的重组工程菌经酶学性质分析后,表明其不仅可以消除植物性饲料中葡聚糖的抗营养作用,还可以促进动物消化道中有益菌的定植,进而维持机体健康。然而,该酶在动物消化道复杂环境中的稳定性以及对饲料实际消化率的提升效果,仍需进一步研究。

2.3.3 提高繁殖性能

与传统促卵泡激素(follicle-stimulating hormone,FSH)相比,重组促卵泡激素(recombinant follicle-stimulating hormone,rFSH)能显著提高超排供体的黄体数和可回收胚胎数[67]。研究表明,单剂量rFSH在肉牛和绵羊超排诱导中同样有效,且未观察到明显不良反应[68]。在体外胚胎生产方面,Rodrigues等[69]研究发现,于活体采卵前3 d对供体单次注射100 μg长效rFSH后,尽管穿刺卵泡总数和卵母细胞回收率与对照组相比无显著差异,但卵母细胞可用率提高17个百分点,卵裂率提高21.4个百分点,囊胚率提高10.3个百分点。上述结果表明,rFSH有望替代传统FSH,促进多个卵泡成熟,从而提高反刍动物的繁殖性能。
基因工程菌在反刍动物营养中的应用见表1
表1 基因工程菌在反刍动物营养中的应用

Table 1 Application of genetically engineered bacteria in ruminant nutrition

目的基因或原始菌
Target genes or
original bacteria
重组方法
Recombination
approaches
构建的基因工程菌
Constructed genetically
engineered bacteria
功能
Functions
参考文献
References
β-葡萄糖苷酶的2个亚基
(bglAbglB)
Two subunits (bglA and
bglB) of β-glucosidase
电穿孔法 乳酸乳球菌
(Lactococcus lactis)
NZ9000/pMG36e-usp45-
bglA-usp45-bglB
纤维素酶活性提高3.5倍 [57]
溶纤维丁酸弧菌
Butyrivibrio
fibrisolvens
电穿孔法 溶纤维丁酸弧菌
(Butyrivibrio fibrisolvens)
H17c/pUBxynA
中性洗涤纤维降
解率提高28.7%
[58]
多形拟杆菌5482
Bacteroides
thetaiotaomicron 5482
CRISPR/
Cas9技术
多形拟杆菌
(Bacteroides thetaiotaomicron)
BTX
木聚糖酶活性提高30% [59]
编码氟乙酸脱卤酶的基因
Encoding fluoroacetate
dehalogenase gene
电穿孔法 基因工程溶纤维
丁酸弧菌
未接种工程菌的绵羊氟
乙酸中毒后心率达到
接种工程菌的5倍
[63]
埃氏巨球菌H6
Megasphaera
elsdenii H6
电穿孔法 埃氏巨球菌
(Megasphaera elsdenii)
H6F32
发酵18 h后,乳酸含量降低
78.27%,pH提高41.82%
[64]
葡聚糖酶基因IDSGluc5-31
Glucanase gene
IDSGluc5-31
电穿孔法 大肠杆菌
(Escherichia coli)
BL21/pET28a/IDSGluc5-31
40 ℃处理1 h后,仍能保持
79.95%的残余活性
[66]
牛促卵泡激素
bFSH
电穿孔法 牛促卵泡激素(bFSH)
原核工程菌
卵母细胞可用率提高17个百分
点,卵裂率提高21.4个百分点,
囊胚率提高10.3个百分点
[69]
小韦荣球菌V1
Veillonella
parvula V1
转座子Tn5诱变 小韦荣球菌
(Veillonella parvula)
TnV1
瘤胃乳酸含量降低34.7%,
乙酸/丙酸值降低17.6%
[70]
埃氏巨球菌H6
Megasphaera
elsdenii H6
转座子
Tn5诱变
埃氏巨球菌TnH6 瘤胃乳酸含量降低45.8%,
乙酸/丙酸值降低48.5%
[71]
杂合抗菌肽CC34
Hybrid antimicrobial
peptide CC34
电穿孔法 毕赤酵母
(Pichia pastoris)
抗菌肽CC34工程菌
pGAPZαA/
CC34-SMD1168
羔羊粗蛋白质、酸性洗涤纤维
和钙表观消化率分别提高
7.2%、10.9%和9.7%;血清免疫
球蛋白A(IgA)、免疫球蛋白G
(IgG)和免疫球蛋白M含量分别
提高1.59、1.15和0.91倍;
血清总抗氧化能力以及谷胱甘肽过
氧化物酶、超氧化物歧化酶、过氧
化氢酶活性分别提高31.7%、
53.9%、81.2%、19.5%
[72]
杂合抗菌肽CC31
Hybrid antimicrobial
peptide CC31
电穿孔法 枯草芽孢杆菌
(Bacillus subtilis)
WB800N-CC31工程菌
犊牛日增重提高7.4%;
试验第20天时,血清谷丙
转氨酶活性和总胆固醇含量
分别提高36.2%和13.8%;
试验第40天时,血清IgA和IgG
含量分别提高83.9%和79.4%;
试验第60天时,粗脂肪和粗灰
分表观消化率分别提高30.0%和
7.5%,血清IgA含量提高77.8%
[73]
白色瘤胃球菌内切-1,4-
β-葡聚糖酶
Ruminococcus albus
endo-1,4-β-glucanase
电穿孔法 大肠杆菌JM103/
pURA1-4
20 h后,酶活性的稳定性
约为目的基因的70%
[74]
牛凝乳酶基因GCYM
Bovine chymosin
gene GCYM
电穿孔法 牛凝乳酶基因黑曲霉
(Aspergillus niger)
工程菌pSZH-GCYM
重组菌株酶活性是宿主
菌株的5.6倍
[75]
β-葡萄糖苷酶的2个亚基
(bglAbglB)
Two subunits (bglA and
bglB) of β-glucosidase
电穿孔法 大肠杆菌C41/pET-28a::
bglA,大肠杆菌C41/pET-
28a::bglB
pET-28a::bglA与pET-28a::
bglB等比例混合时,纤维素酶
活性提高4.2倍
[76]
牛凝乳酶基因
Bovine chymosin gene
电穿孔法 乳酸克鲁维酵母
(Kluyveromyces lactis)
工程菌
凝乳酶活性提高2.56倍 [77]
反刍兽月形单胞菌K6
Selenomonas
ruminantium K6
转座子Tn5诱变 耐酸工程菌
F-K6-lm4208
在急性酸中毒条件下
能够使瘤胃液pH提高43.2%,
乙酸/丙酸值降低37.3%
[78]
氟乙酸脱卤酶基因H1
Fluoroacetate
dehalogenase gene H1
电穿孔法 溶纤维丁酸弧菌
OB156
溶纤维丁酸弧菌OB156
无细胞裂解液脱卤酶活性约为
模式菌株的20倍
[79]

3 基因工程菌在实际应用中的挑战与前景

3.1 基因工程菌在实际应用中的挑战

在早期家畜基因工程研究中,研究人员普遍采用载体随机插入、病毒的基因修饰、体细胞核移植和显微注射等多种基因工程技术。然而,这些方法常伴随实验安全性问题、效率低下以及有异常个体出现的状况[80]。随着分子生物学的发展,基因工程菌的兴起提升了基因工程技术的精准性和高效性,在家畜性能改良方面发展迅速,不仅增强了家畜疾病抵抗力和生产力,同时也减少了时间和劳动成本[81-82]。尽管如此,基因工程菌的应用仍面临多重瓶颈。首先,多数工程菌表达外源基因的表达量不足,对功能性蛋白的表达研究也较少;其次,添加特定基因会受到多种因素的影响,乳酸酸中毒、脱氨等很多实际问题可能更适合通过基因敲除而非敲入的基因工程技术来解决[83];最后,构建基因工程菌的主要矛盾在于基因测序揭示了越来越多功能基因,这些基因来自难以培养、生长周期长或培养条件苛刻的微生物,但可用于表达或传递这些基因的微生物底盘却不足[84]
随着CRISPR/Cas9技术、转座子诱变等技术的突破,基因工程菌的设计将更加精细、高效,其发展将更加科学、便利。因此,基因工程菌有望成为推动畜牧业发展的核心技术。

3.2 基因工程菌在实际应用中的前景

随着合成生物学的发展,高通量筛选、机器学习辅助底盘菌设计有望能加速功能底盘菌的精准开发。其中,液滴微流控等高通量培养技术已大幅提升瘤胃潜在益生菌的分离效率[85];机器学习辅助模型则可从健康宿主的微生物组中系统预测功能菌群[86]。2种技术协同联用,可从海量遗传信息中快速锁定目标基因和优质底盘菌,大幅缩短工程菌从设计到功能验证的研发周期。
当前,基因工程菌的构建也已从单基因表达迈向多基因协同调控和环境信号响应。代谢通路重构作为核心策略,能够在底盘菌中建立新的代谢网络。Strachan等[87]揭示了瘤胃中的2种巨球型菌属(Megasphaera)菌种在乳酸代谢通路上的分化和重构,其关键基因和酶可作为可转移的代谢模块,为工程菌改造提供设计思路;依据目标产物可灵活选用代谢工程策略,同时对比通路中酶成本和能量产出,也能为工程菌代谢优化提供理论参考。环境响应型智能菌株则利用pH、群体感应(QS)等生物传感器,实现基因表达的时空精准控制。Li等[88]系统总结了QS在瘤胃微生物群落中的调控机制,重点解析了N-酰基高丝氨酸内酯(N-acyl homoserine lactones,AHLs)、自诱导肽(autoinducing peptides,AIPs)和自诱导物-2(autoinducer-2,AI-2)这3类信号分子的作用途径及其对瘤胃发酵、免疫、生物膜和病原抑制的影响,为设计基于QS的瘤胃工程菌提供了理论基础。未来,通过整合多层次的感应回路,并借助高通量筛选和机器学习等新技术,有望开发出能同时感知多种信号的智能益生菌,实现更精准、动态、安全的反刍动物营养调控。

4 小结与展望

微生物在反刍动物营养中具有不可或缺的作用,基因工程菌的开发和应用已成为当前研究热点。已有研究验证,基因工程菌在反刍动物营养中的有效应用主要体现在提升纤维降解率、调控乳酸代谢以及氟乙酸解毒等方向。然而,当前技术仍面临诸多瓶颈:底盘菌多样性不足、功能蛋白表达量低、基因敲除策略研究薄弱以及复杂瘤胃环境中工程菌的稳定性和安全性缺乏系统评估等。
展望未来,基因工程菌的发展需从改造和应用2个层面实现突破。在改造层面,应发展多基因协同编辑技术,在单一菌株中整合多条代谢通路;构建动态调控回路,利用QS或小分子生物传感器实现精细的控制代谢流;利用定向进化获得耐酸、耐氧的底盘菌,提高其在瘤胃极端微环境中的生存能力。在应用层面,可设计“自杀式”或“可控释放”工程菌以提升生物安全性;开发合成菌群(SynComs)替代单一工程菌策略,利用菌株之间的代谢分工与交叉喂养,突破单菌株性能局限;结合瘤胃递送载体(如微胶囊、纳米材料)提升工程菌的定植效率。其中,2个最有潜力的突破方向如下:其一,构建对pH敏感的启动子驱动的工程菌,实现酸中毒条件下的即时响应;其二,开发兼性厌氧型底盘菌,让工程菌在瘤胃的有氧与无氧交界处也能更好地存活和定植。这2个方向为基因工程菌的实际应用奠定了基础。
[1]
STEWART R D, AUFFRET M D, WARR A, et al. Compendium of 4,941 rumen metagenome-assembled genomes for rumen microbiome biology and enzyme discovery[J]. Nature Biotechnology, 2019, 37(8):953-961.

DOI PMID

[2]
STEELE M A, PENNER G B, CHAUCHEYRAS-DURAND F, et al. Development and physiology of the rumen and the lower gut:targets for improving gut health[J]. Journal of Dairy Science, 2016, 99(6):4955-4966.

DOI

[3]
AKIN D E. Microscopic evaluation of forage digestion by rumen microorganisms-a review[J]. Journal of Animal Science, 1979, 48(3):701-710.

DOI

[4]
CASTILLO C, HERNÁNDEZ J. Ruminal fistulation and cannulation:a necessary procedure for the advancement of biotechnological research in ruminants[J]. Animals, 2021, 11(7):1870.

DOI

[5]
严慧, 胡文悦, 宋晓晴, 等. 瘤胃细菌的分离培养研究进展[J]. 生物技术通报, 2021, 37(8):294-306.

DOI

YAN H, HU W Y, SONG X Q, et al. Research advances in isolation and cultivation of rumen bacteria[J]. Biotechnology Bulletin, 2021, 37(8):294-306. (in Chinese)

DOI

[6]
李思经. 重组瘤胃细菌有利于饲料消化[J]. 生物技术通报, 1992(9):5.

LI S J. Reorganizing rumen bacteria is beneficial for feed digestion[J]. Biotechnology Bulletin, 1992(9):5. (in Chinese)

[7]
卢雯, 刘睿娜, 雷璞, 等. 基因工程菌的构建、性能研究及其在疾病诊断和治疗中的应用[J]. 微生物学报, 2023, 63(10):3758-3772.

LU W, LIU R N, LEI P, et al. Genetically engineered bacteria:construction,performance evaluation,and applications in disease diagnosis and treatment[J]. Acta Microbiologica Sinica, 2023, 63(10):3758-3772. (in Chinese)

[8]
DE LORENZO V, KRASNOGOR N, SCHMIDT M. For the sake of the bioeconomy:define what a synthetic biology chassis is![J]. New Biotechnology, 2021, 60:44-51.

DOI

[9]
陈国强, 吴赴清, 郑爽, 等. 我国生物制造底盘菌种现状、问题及对策[J]. 中国科学院院刊, 2025, 40(1):2-13.

CHEN G Q, WU F Q, ZHENG S, et al. Current status and applications of microbial chassis strains for Chinese biomanufacturing industry[J]. Bulletin of Chinese Academy of Sciences, 2025, 40(1):2-13. (in Chinese)

DOI

[10]
ZHAO N, CHEN J W, SHI J T, et al. Research and application of intelligent diagnosis and treatment engineering bacteria[J]. Frontiers in Bioengineering and Biotechnology, 2024, 12:1524376.

DOI

[11]
O’TOOLE P W, MARCHESI J R, HILL C. Next-generation probiotics:the spectrum from probiotics to live biotherapeutics[J]. Nature Microbiology, 2017, 2(5):17057.

DOI

[12]
苏少锋, 萨初拉, 刘红葵, 等. 葡聚糖外切酶和葡聚糖内切酶基因密码子的优化及表达[J]. 畜牧与饲料科学, 2017, 38(3):1-8.

SU S F, SA C L, LIU H K, et al. Codon optimization and expression of endoglucanase-encoding gene and cellobiohydrolase-encoding gene[J]. Animal Husbandry and Feed Science, 2017, 38(3):1-8. (in Chinese)

[13]
吕园梦, 李晓悦, 王悦, 等. 奶牛肠道新型底盘菌的开发与工程菌的构建[J]. 基因组学与应用生物学, 2025, 44(11):1121-1135.

LV Y M, LI X Y, WANG Y, et al. Mining of novel chassis bacteria from the gut of dairy cows and construction of engineered bacteria[J]. Genomics and Applied Biology, 2025, 44(11):1121-1135. (in Chinese)

[14]
FAHNØE U, BUKH J. Full-length open reading frame amplification of hepatitis C virus[M]// LAWM. HepatitisC virus protocols. New York: Humana Press,2019:85-91.

[15]
BARNES W M. PCR amplification of up to 35-kb DNA with high fidelity and high yield from lambda bacteriophage templates[J]. Proceedings of the National Academy of Sciences of the United States of America, 1994, 91(6):2216-2220.

PMID

[16]
LI M Z, ELLEDGE S J. SLIC:a method for sequence- and ligation-independent cloning[M]// PECCOUD J.Gene synthesis:methods and protocols. New York: Humana Press,2012:51-59.

[17]
JIANG W J, ZHAO X J, GABRIELI T, et al. Cas9-assisted targeting of CHromosome segments CATCH enables one-step targeted cloning of large gene clusters[J]. Nature Communications, 2015, 6(1):8101.

DOI

[18]
CONG L, RAN F A, COX D, et al. Multiplex genome engineering using CRISPR/Cas systems[J]. Science, 2013, 339(6121):819-823.

DOI PMID

[19]
徐红梅, 沈志超. 医学论文中转化、转导、转染和感染的辨析[J]. 同济大学学报(医学版), 2011, 32(3):96-100.

XU H M, SHEN Z C. Distinguish transformation, transduction, transfection and infection in medical papers[J]. Journal of Tongji University (Medical Science), 2011, 32(3):96-100. (in Chinese)

[20]
SU F, CHEN X, LIU X, et al. Expression of recombinant HBD3 protein that reduces Mycobacterial infection capacity[J]. AMB Express, 2018, 8(1):42.

DOI

[21]
SAWITZKE J A, THOMASON L C, COSTANTINO N, et al. Recombineering:in vivo genetic engineering in E. coli,S. enterica,and beyond[J]. Methods in Enzymology, 2007, 421:171-199.

[22]
LI R J, LI A Y, ZHANG Y M, et al. The emerging role of recombineering in microbiology[J]. Eng Microbiol, 2023, 3(3):100097.

DOI

[23]
李振. 基于Red/ET同源重组的基因簇克隆、修饰和异源表达平台的构建与应用[D]. 博士学位论文. 济南: 山东大学, 2019.

LI Z. Construction and application of the platform for gene cluster cloning and modification using Red/ET homologous recombination for heterologous expression[D]. Ph.D. Thesis. Ji’nan: Shandong University, 2019. (in Chinese)

[24]
ZHANG Y M, MUYRERS J P P, RIENTJES J, et al. Phage annealing proteins promote oligonucleotide-directed mutagenesis in Escherichia coli and mouse ES cells[J]. BMC Molecular Biology, 2003, 4(1):1.

DOI

[25]
LI C Y, YAN Y C, LI Z X, et al. Rescue of a unique ovine parainfluenza virus type 3 strain via Red/ET assembly[J]. Microbial Pathogenesis, 2025, 203:107507.

DOI

[26]
SANDOVAL-VILLEGAS N, NURIEVA W, AMBERGER M, et al. Contemporary transposon tools:a review and guide through mechanisms and applications of Sleeping Beauty,piggyBac and Tol2 for genome engineering[J]. International Journal of Molecular Sciences, 2021, 22(10):5084.

DOI

[27]
SCHMITZ M, QUERQUES I. DNA on the move:mechanisms,functions and applications of transposable elements[J]. FEBS Open Bio, 2024, 14(1):13-22.

DOI

[28]
HALLET B, SHERRATT D J. Transposition and site-specific recombination:adapting DNA cut-and-paste mechanisms to a variety of genetic rearrangements[J]. FEMS Microbiology Reviews, 1997, 21(2):157-178.

DOI

[29]
SHAPIRO J A. Molecular model for the transposition and replication of bacteriophage Mu and other transposable elements[J]. Proceedings of the National Academy of Sciences of the United States of America, 1979, 76(4):1933-1937.

PMID

[30]
MAO N, CUBILLOS-RUIZ A, CAMERON D E, et al. Probiotic strains detect and suppress cholera in mice[J]. Science Translational Medicine, 2018, 10(445):eaao2586.

DOI

[31]
MA Y W, ZHANG L F, HUANG X X. Genome modification by CRISPR/Cas9[J]. The FEBS Journal, 2014, 281(23):5186-5193.

DOI

[32]
ZHU Y M. Advances in CRISPR/Cas9[J]. BioMed Research International, 2022, 2022:9978571.

DOI

[33]
赵进韬, 张瑞国, 王喜军. CRISPR-Cas9基因编辑技术在羊育种中的研究进展[J]. 中国草食动物科学, 2025, 45(5):79-84.

ZHAO J T, ZHANG R G, WANG X J. Research progress on CRISPR-Cas9 gene editing technology in sheep breeding[J]. China Herbivore Science, 2025, 45(5):79-84. (in Chinese)

[34]
FAURE G, SHMAKOV S A, MAKAROVA K S, et al. Comparative genomics and evolution of trans-activating RNAs in Class 2 CRISPR-Cas systems[J]. RNA Biology, 2019, 16(4):435-448.

DOI PMID

[35]
NIU Y Y, ZHAO X E, ZHOU J K, et al. Efficient generation of goats with defined point mutation (I397V) in GDF9 through CRISPR/Cas9[J]. Reproduction Fertility and Development, 2018, 30(2):307-312.

DOI

[36]
EATON S L, PROUDFOOT C, LILLICO S G, et al. CRISPR/Cas9 mediated generation of an ovine model for infantile neuronal ceroid lipofuscinosis (CLN1 disease)[J]. Scientific Reports, 2019, 9(1):9891.

DOI PMID

[37]
王睿, 程雨辰, 沈延骏, 等. 益生菌对反刍动物瘤胃甲烷生成影响的研究进展[J]. 中国饲料, 2025(5):79-84,111.

WANG R, CHENG Y C, SHEN Y J, et al. Research progress on the effect of probiotics on rumen methane production in ruminants[J]. China Feed, 2025(5): 79-84,111. (in Chinese)

[38]
LI Y J, PAN S F, ZHANG Y, et al. Harnessing type Ⅰ and type Ⅲ CRISPR-Cas systems for genome editing[J]. Nucleic Acids Research, 2016, 44(4):e34.

DOI

[39]
KHELAIFIA S, GARIBAL M, ROBERT C, et al. Draft genome sequence of a human-associated isolate of Methanobrevibacter arboriphilicus,the lowest-G+C-content archaeon[J]. Genome Announcements, 2014, 2(1):e01181-13.

[40]
LI J N, LI X T, LI X, et al. CRISPR/Cas9-generated CD46-knockout spermatogonial stem cells reveal mechanisms of BVDV-induced reproductive dysfunction in male livestock[J]. Veterinary Microbiology, 2026, 312:110807.

DOI

[41]
LEE J, LEE J W. CRISPRi-based phenotypic screening in bacteria:technologies,applications,and prospects[J]. Biotechnology and Bioprocess Engineering, 2026, 31(1):1-11.

DOI

[42]
CALL S N, ANDREWS L B. CRISPR-based approaches for gene regulation in non-model bacteria[J]. Frontiers in Genome Editing, 2022, 4:892304.

DOI

[43]
ZHAO Y C, TAN J, FANG L Y, et al. Leveraging gene editing to combat methane emissions in ruminant agriculture[J]. Trends in Biotechnology, 2025, 43(11):2771-2785.

DOI

[44]
WANG K K, TANG X C, LIU Y, et al. Efficient generation of orthologous point mutations in pigs via CRISPR-assisted ssODN-mediated homology-directed repair[J]. Molecular Therapy Nucleic Acids, 2016, 5(11):e396.

DOI

[45]
ARNDT C, HRISTOV A N, PRICE W J, et al. Full adoption of the most effective strategies to mitigate methane emissions by ruminants can help meet the 1.5 C target by 2030 but not 2050[J]. Proceedings of the National Academy of Sciences, 2022, 119(20):e2111294119.

DOI

[46]
TAPIO I, SNELLING T J, STROZZI F, et al. The ruminal microbiome associated with methane emissions from ruminant livestock[J]. Journal of Animal Science and Biotechnology, 2017, 8(1):7.

DOI

[47]
SUBEDI U, KADER K, JAYAWARDHANE K N, et al. The potential of novel gene editing-based approaches in forages and rumen archaea for reducing livestock methane emissions[J]. Agriculture, 2022, 12(11):1780.

DOI

[48]
CHEN P J, LIU D R. Prime editing for precise and highly versatile genome manipulation[J]. Nature Reviews Genetics, 2023, 24(3):161-177.

DOI

[49]
LI J Y, ZHANG C, HE Y B, et al. Plant base editing and prime editing:the current status and future perspectives[J]. Journal of Integrative Plant Biology, 2023, 65(2):444-467.

DOI

[50]
ZHANG X L, ZHONG R Z, WU J, et al. Dietary selection of distinct gastrointestinal microorganisms drives fiber utilization dynamics in goats[J]. Microbiome, 2025, 13(1):118.

DOI

[51]
WANG Y, MCALLISTER T A. Rumen microbes,enzymes and feed digestion-a review[J]. Asian-Australasian Journal of Animal Sciences, 2002, 15(11):1659-1676.

DOI

[52]
SOLTAN Y A, MORSY A S, SALLAM S M A, et al. Contribution of condensed tannins and mimosine to the methane mitigation caused by feeding Leucaena leucocephala[J]. Archives of Animal Nutrition, 2013, 67(3):169-184.

DOI

[53]
SOLTAN Y A, PATRA A K. Ruminal microbiome manipulation to improve fermentation efficiency in ruminants[M]// PATRAA K, PAYAN-CARREIRAR. Animalfeed science and nutrition-production, healthand environment. London:IntechOpen, 2021.

[54]
GILMORE S P, HENSKE J K, O’MALLEY M A. Driving biomass breakdown through engineered cellulosomes[J]. Bioengineered, 2015, 6(4):204-208.

DOI PMID

[55]
ZHAO J, SHAO T, CHEN S, et al. Characterization and identification of cellulase-producing Enterococcus species isolated from Tibetan yak (Bos grunniens) rumen and their application in various forage silages[J]. Journal of Applied Microbiology, 2021, 131(3):1102-1112.

DOI

[56]
XUE X L, WU Y L, QIN X, et al. Revisiting overexpression of a heterologous β-glucosidase in Trichoderma reesei:fusion expression of the Neosartorya fischeri Bgl3A to cbh1 enhances the overall as well as individual cellulase activities[J]. Microbial Cell Factories, 2016, 15(1):122.

DOI

[57]
WANG C, YANG Y Z, MA C J, et al. Expression of β-glucosidases from the yak rumen in lactic acid bacteria:a genetic engineering approach[J]. Microorganisms, 2023, 11(6):1387.

DOI

[58]
GOBIUS K S, XUE G P, AYLWARD J H, et al. Transformation and expression of an anaerobic fungal xylanase in several strains of the rumen bacterium Butyrivibrio fibrisolvens[J]. Journal of Applied Microbiology, 2002, 93(1):122-133.

DOI

[59]
ZIEMER C J, SHARP R, STERN M D, et al. Persistence and functional impact of a microbial inoculant on native microbial community structure,nutrient digestion and fermentation characteristics in a rumen model[J]. Systematic and Applied Microbiology, 2002, 25(3):416-422.

DOI

[60]
武心镇, 高玉霞, 欧海龙, 等. 奶牛瘤胃中反刍兽月形单胞菌的分离鉴定[J]. 动物医学进展, 2008, 183(10):25-28.

WU X Z, GAO Y X, OU H L. Isolation and characterization of Selenomonas ruminantium from the rumen of dairy cows[J]. Progress in Veterinary Medicine, 2008, 183(10):25-28. (in Chinese)

[61]
苑学, 孙国权, 逄晓阳, 等. 反刍月形单胞菌乙酸生成缺陷株的构建及相关酶活性分析[J]. 安徽农业科学, 2011, 39(25):15390-15392,15394.

YUAN X, SUN G Q, PANG X Y, et al. Construction of Selenomonas ruminantium with the acetic acid generation deficiency and analysis on the relative enzyme activity[J]. Journal of Anhui Agricultural Sciences, 2011, 39(25):15390-15392,15394. (in Chinese)

[62]
逄晓阳. 反刍月形单胞菌及其基因缺失工程菌对瘤胃微生物发酵的影响[D]. 硕士学位论文. 长春: 吉林大学, 2005.

PANG X Y. Effects of Selenomonas ruminantium and its gene deletion engineering bacteria on the fermentation of ruminal microorganism[D]. Master’s Thesis. Changchun: Jilin University, 2005. (in Chinese)

[63]
GREGG K, HAMDORF B, HENDERSON K, et al. Genetically modified ruminal bacteria protect sheep from fluoroacetate poisoning[J]. Applied and Environmental Microbiology, 1998, 64(9):3496-3498.

PMID

[64]
LONG M, FENG W J, LI P, et al. Effects of the acid-tolerant engineered bacterial strain Megasphaera elsdenii H6F32 on ruminal pH and the lactic acid concentration of simulated rumen acidosis in vitro[J]. Research in Veterinary Science, 2014, 96(1):28-29.

DOI

[65]
DOAN T, NEUJAHR A C, FERNANDO S C. PSV-8 development of genetically engineered microbes as probiotics to enhance ruminant productivity[J]. Journal of Animal Science, 2024, 102(Suppl.2):335.

[66]
李锘, 高德英, 曹佳雯, 等. 湖羊瘤胃微生物葡聚糖酶基因IDSGluc5-31的克隆、表达与性质研究[J]. 中国畜牧杂志, 2022, 58(9):220-227.

LI N, GAO D Y, CAO J W, et al.Cloning, expression and characterization of the ruminal microbial glucanase gene IDSGluc5-31 in goats[J]. Chinese Journal of Animal Science, 2022, 58(9):220-227. (in Chinese)

[67]
GUTIÉRREZ-REINOSO M A, ARRESEIGOR C J, DRIEDGER B, et al. Effects of recombinant FSH (bscrFSH) and pituitary FSH (FSH-p) on embryo production in superovulated dairy heifers inseminated with unsorted and sex-sorted semen[J]. Animal Reproduction Science, 2023, 252:107226.

DOI

[68]
SANDERSON N, MARTINEZ M. A single administration of a long-acting recombinant ovine FSH (roFSH) for cattle superovulation[J]. Theriogenology, 2020, 154:66-72.

DOI PMID

[69]
RODRIGUES C A, CASTRO NETTO A, CATUSSI B L C, et al. 084 Superstimulation prior to the ovum pick-up with a single dose of recombinant FSH improves in vitro embryo production in Holstein heifers[J]. Animal-Science Proceedings, 2023, 14(3):483-484.

DOI

[70]
杨文艳. 小韦荣球菌及其乙酸生成基因缺失工程菌对瘤胃微生物发酵的影响[D]. 博士学位论文. 长春: 吉林大学, 2007.

YANG W Y. Effects of Veillonella parvula and its gene deletion engineering bacteria on the ruminal microbial fermentation[D]. Ph.D. Thesis. Changchun: Jilin University, 2007. (in Chinese)

[71]
孙国权, 刘国文, 邢欣, 等. 埃氏巨型球菌及其乙酸生成关键酶基因缺失工程菌体外代谢特性的初步研究[J]. 中国畜牧兽医, 2010, 37(4):26-29.

SUN G Q, LIU G W, XING X, et al. Metabolic characterization of Megasphaera elsdenii and its gene deletion engineering bacteria in vitro[J]. China Animal Husbandry & Veterinary Medicine, 2010, 37(4):26-29. (in Chinese)

[72]
杜家华. 抗菌肽CC34工程菌粉对羔羊生长、免疫、抗氧化能力及胃肠道菌群的影响[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2022.

DU J H.Effects of antimicrobial peptide CC34 engineered bacteria powder on growth,immunity,antioxidant capacity and gastrointestinal flora in lambs[D].Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2022. (in Chinese)

[73]
聂炼. WB800N-CC31工程菌和屎肠球菌及其复合菌对犊牛生长性能及肠道菌群的影响[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2019.

NIE L. Effects of engineering bacteria WB800N-CC31,Enterococcus faecium and their complex bacteria on growth and intestinal flora of calves[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2019. (in Chinese)

[74]
OHMIYA K, DEGUCHI H, SHIMIZU S. Modification of the properties of a Ruminococcus albus endo-1,4-beta-glucanase by gene truncation[J]. Journal of Bacteriology, 1991, 173(2):636-641.

DOI

[75]
张莹莹. β-甘露聚糖酶基因和牛凝乳酶基因黑曲霉工程菌的构建[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2013.

ZHANG Y Y.Constrution of β-mannanase gene and bovine prochymosin gene engineering strains of Aspergillus niger[D]. Master’s Thesis.Harbin:Northeast Agricultural University, 2013. (in Chinese)

[76]
王艳. 多粘类芽胞杆菌纤维素酶基因在大肠杆菌和乳酸菌中的表达[D]. 硕士学位论文. 兰州: 甘肃农业大学, 2017.

WANG Y. Expression of cellulase gene in Escherichia coli and lactic acid bacteria from Bacillus polymyxa[D]. Master’s Thesis. Lanzhou: Gansu Agricultural University, 2017. (in Chinese)

[77]
刘开放, 王敏, 郑君, 等. 骆驼凝乳酶工程菌发酵培养基的优化[J]. 现代食品科技, 2017, 33(12):170-176.

LIU K F, WANG M, ZHENG J, et al. Optimization of fermentation medium for genetically engineered strain with camel chymosin-producing capability[J]. Modern Food Science & Technology, 2017, 33(12):170-176. (in Chinese)

[78]
龙淼. 耐酸性反刍兽月形单胞菌构建及对瘤胃微生物发酵的影响[D]. 博士学位论文. 长春: 吉林大学, 2009.

LONG M. Construction of acid-tolerant Selenomonas ruminantium and effect on the fermentation of ruminal microorganisms[D]. Ph.D. Thesis. Changchun: Jilin University, 2009. (in Chinese)

[79]
GREGG K, COOPER C L, SCHAFER D J, et al. Detoxification of the plant toxin fluoroacetate by a genetically modified rumen bacterium[J]. Bio/Technology, 1994, 12(13):1361-1365.

[80]
SEGURA M M, ALBA R, BOSCH A, et al. Advances in helper-dependent adenoviral vector research[J]. Current Gene Therapy, 2008, 8(4):222-235.

PMID

[81]
KWON D H, GIM G M, YUM S Y, et al. Current status and future of gene engineering in livestock[J]. BMB Reports, 2024, 57(1):50-59.

DOI

[82]
KALDS P, CRISPO M, LI C, et al. Generation of double-muscled sheep and goats by CRISPR/Cas9-mediated knockout of the myostatin gene[J]. Methods in Molecular Biology, 2022, 2495:295-323.

[83]
RUSSELL J B, WILSON D B. Potential opportunities and problems for genetically altered rumen microorganisms[J]. The Journal of Nutrition, 1988, 118(2):271-279.

DOI

[84]
LIU Y T, FENG J, PAN H C, et al. Genetically engineered bacterium:principles,practices,and prospects[J]. Frontiers in Microbiology, 2022, 13:997587.

DOI

[85]
WU R M, JI P, HUA Y L, et al. Research progress in isolation and identification of rumen probiotics[J]. Frontiers in Cellular and Infection Microbiology, 2024, 14:1411482.

DOI

[86]
ZHAI Y T, KIM M, FAN P X, et al. Machine learning-enhanced assessment of potential probiotics from healthy calves for the treatment of neonatal calf diarrhea[J]. Frontiers in Microbiology, 2024, 15:1507537.

DOI

[87]
STRACHAN C R, BOWERS C M, KIM B C, et al. Distinct lactate utilization strategies drive niche differentiation between two co-existing Megasphaera species in the rumen microbiome[J]. The ISME Journal, 2025, 19(1):wraf147.

[88]
LI M L, ZHAO G Y, LI M M. Regulatory mechanisms of quorum sensing in microbial communities and their potential applications in ruminant livestock production[J]. Journal of Advanced Research, 2026, 83:37-50.

DOI

Outlines

/